本文提出一种方法,可从纯合突变型Lamin Δ8-11小鼠模型中高效获取出生后早期发育阶段的单个肌纤维,该模型是Emery-Dreifuss型肌营养不良症(EDMD)的一种极为严重的动物模型。
本文内容
摘要
摘要
常染色体显性遗传的Emery-Dreifuss型肌营养不良症(EDMD)由LMNA基因突变引起,该基因编码A型核纤层蛋白,属于中间丝蛋白家族,可维持核膜及核质组分的结构稳定。我们近期研究发现,EDMD中的肌肉萎缩可归因于影响肌肉(卫星)干细胞再生能力的内在表观遗传功能障碍。分离并培养单根肌纤维是体外监测卫星细胞在其微环境中行为的最接近生理状态的方法之一,因为卫星细胞仍位于包裹肌纤维的基底膜与肌膜之间。因此,该方法为研究多种小鼠模型中的卫星细胞提供了不可替代的实验范式。本文中,我们描述了一种经重新优化的方法,用于从出生后小鼠后肢肌肉(胫骨前肌、趾长伸肌、腓肠肌和比目鱼肌)中分离完整且具有活性的单根肌纤维。依据本方案,我们成功在出生仅19天的Lamin Δ8-11 -/-小鼠(一种严重的EDMD小鼠模型)中开展了卫星细胞的研究。
我们详细描述了肌纤维及其相关卫星细胞衍生后代的分离步骤以及培养条件。当野生型小鼠来源的卫星细胞在富含生长因子的培养基中培养时,这些细胞会被激活、增殖,并最终分化或进行自我更新。而在纯合的 Lamin Δ8-11 -/- 突变小鼠中,这些能力严重受损。
如果严格遵循该技术,即使在出生后早期发育阶段以及脆弱的肌肉中,也能研究与肌纤维相关卫星细胞有关的所有过程。
引言
骨骼肌是一种分化组织,具有在运动或创伤后最强的再生能力之一1这一特征 主要是 由于存在一种称为卫星细胞的干细胞,其名称源于它们位于肌纤维基底膜与肌膜之间的外围位置2在出生后的发育过程中,卫星细胞增殖并逐步分化,从而促进骨骼肌的生长。成年后,卫星细胞进入可逆的静息状态,在生理或病理损伤刺激下被激活,进而增殖并分化以修复受损肌肉。3卫星细胞在正常经历这些不同再生阶段以及进行自我更新方面的能力缺陷,已明确与肌肉萎缩相关联,无论是在生理衰老过程中4,5,6 或在肌肉退行性疾病中,例如肌营养不良症7,8,9,10.
研究卫星细胞的体外培养主要有两种方法:一种是从整个肌肉中通过机械和化学方法分离出的单核细胞建立原代肌源性细胞培养11,12;另一种是分离肌纤维进行培养13,14,15,16,17,18,19,20。在第一种方法中,卫星细胞的分离过程包括将从小鼠体内提取的整块肌肉进行吹打分散、化学消化、过滤以及荧光激活细胞分选(FACS)21。尽管该方法在多种模型中均能有效分离卫星细胞,但其涉及多个可变因素,会使卫星细胞暴露于应激环境,并破坏其生理微环境22,23。相比之下,肌纤维分离采用基质降解酶对肌肉组织进行较温和的消化,并结合机械剪切,从而显著减少对干细胞的损伤20。这种第二种方法能够更高效地获得存活的卫星细胞,这些细胞仍物理性地附着于肌纤维上,位于基底膜与肌膜之间,因而可在其生理微环境中进行分析19,20。
近年来,已提出多种不同方案,以正确且高效地从骨骼肌中分离单个肌纤维。早在1986年,Bischoff 就提出了一种从Flexor Digitorum Brevis13中分离纤维的方案;随后在1995年,Rosenblatt 等人对该方案进行了改进,以实现更高效的肌纤维分离14。自那时起,许多其他研究者针对其他类型的肌肉(如Extensor Digitorum Longus(EDL)和Tibialis Anterior(TA))提出了相应的优化步骤15,16,17,18,19,20,这些肌肉更长,但更为脆弱14。分离得到的单根肌纤维可在贴壁条件下培养,以促进卫星细胞来源的成肌细胞扩增;也可在悬浮条件下培养,最长可达 96 小时,用于追踪单个卫星细胞产生的子代细胞19(图1)。通过在培养基中使用不同浓度的血清,可诱导卫星细胞的活化、增殖和/或分化,从而研究其在这些不同阶段之间正常转换的能力 1。
我们最近描述了在EDMD小鼠模型(Lamin Δ8-11 -/- 小鼠)中卫星干细胞池耗竭背后的表观遗传机制7。由于这些小鼠通常在出生后4至8周内因严重的肌肉丢失而死亡24,因此我们试图通过聚焦于出生后肌肉发育阶段的分析,来捕捉导致疾病早期 onset 的分子缺陷。我们从野生型和Lamin Δ8-11 -/- 突变型小鼠(出生后19天)中分离并培养了漂浮的单根肌纤维7。在此阶段,肌肉缺陷已明显存在,但小鼠仍存活。然而,由于上述所有单根肌纤维提取方案均是为成年小鼠的骨骼肌优化的,我们需要根据我们的研究目的进行调整:即针对年龄和体型都非常小、且肌纤维极为脆弱的小鼠。因此,本文描述了我们对Rudnicki实验室提出的方案进行的重新优化19,以便从出生后发育阶段的小鼠以及严重营养不良性肌肉(例如来自Lamin Δ8-11 -/- 小鼠的肌肉)中获得足够数量的单根活体肌纤维24。该方法的最终目标是提供一种标准化的操作流程 ,用于研究任何其他小鼠模型中与肌纤维相关的肌肉干细胞,特别是在关注出生后发育早期阶段,或研究携带特定疾病导致肌纤维对机械应力更敏感的小鼠模型时。
方案
所有实验操作均在意大利卫生部和机构动物护理与使用委员会的伦理批准下进行(批准编号:83/2019-PR)。动物饲养于意大利米兰圣拉斐尔医院的授权设施中(批准编号:N. 127/2012-A)。
1. 肌肉解剖与肌纤维培养
- 仪器设备准备。
- 开始之前,按照所述方法配制所有必要的溶液 表1这些溶液需要新鲜配制。
- 用70%乙醇清洁实验过程中将使用的所有表面和工具。
- 在开始处死小鼠之前,使用马血清(HS)对100 mm和35 mm的培养皿进行包被。包被所有培养皿以防止肌纤维附着于塑料表面。建议每只小鼠使用一个100 mm培养皿和四个35 mm培养皿。
- 去除多余的HS后,将包被的培养皿置于37 °C培养箱中孵育30分钟。随后加入洗涤液或培养基(每只小鼠对应两个35 mm培养皿)。
注意:也可使用含10% HS的杜尔贝科改良伊格尔培养基(DMEM)溶液包被培养皿。务必使用包被过的培养皿。可使用不同尺寸的培养皿,但推荐使用小型培养皿。 - 用于纤维分离,按图示准备无菌巴斯德吸管 图2. 对于每一项 小鼠准备一个大孔径移液管用于肌肉组织操作和机械性解离(图2A)以及一根用于选择纤维的小孔移液管(图2B)。使用金刚石笔将每根玻璃移液管切割至所需长度,并在火焰上灼烧以磨平移液管边缘。
- 使用前,用HS短暂润湿每支移液管以进行包被。
- 小鼠处死与肌肉解剖
- 在开始解剖操作前,将消化液于室温预热10分钟。聚丙烯FACS圆底管是最适合的容器。
- 在开始肌肉组织取材前,立即按照国家IACUC的适当建议处死小鼠。
- 用70%乙醇润湿其下部身体,再切割皮肤,以便更容易去除毛发。
- 将小鼠俯卧于覆盖有铝箔的聚苯乙烯支撑物上,从背部中线开始沿腿部方向纵向剪开皮肤。
- 小心地去除皮肤,避免接触肌肉和肌腱。可以将全部皮肤撕除。
- 剪下小鼠的两条后肢,并迅速进行解剖。
注意:如果操作更方便,也可以在完整的小鼠身上继续解剖,但对腿部进行操作可在后续切割中提供更大的灵活性和精确性。 - 用针在足部水平将腿固定在支架上,然后按以下顺序开始分离目标骨骼肌:胫骨前肌(TA)、趾长伸肌(EDL)。 腓肠肌 和 腓肠肌.
- 用尖头镊子在踝关节水平提起趾长伸肌(TA)的下端肌腱并将其切断,然后用精细剪刀沿趾长伸肌(TA)四周剪开,直至髌骨水平的另一端肌腱图3A)。转移至消化液中。
- 提起趾长伸肌(EDL)的下端肌腱,轻轻向上牵拉至另一端肌腱处,将其与其他肌肉分离。切断后放入消化液中。
注意:由于EDL可能过于细小而难以与TA分离切割,可将二者一同解剖(图3B)。然后,如果整块肌肉过大,可从肌腱处开始,沿肌纤维纵向将肌肉切成2-3段(图3C). - 旋转腿部以显露背部肌肉,并用针固定足部。提起跟腱, 腓肠肌 会自动与其他肌肉分离。上部肌腱位于髌骨后方,将其切断并放入消化液中。
- 抬起腿部的外侧肌腱(相对于身体),并获取 腓肠肌 用镊子在下方轻轻滚动,将其与其他肌肉分离。
- 对另一条腿执行相同操作(步骤 1.2.7 至 1.2.11)。
- 肌肉消化
- 将含有所有肌肉的消化液置于37 °C水浴中孵育约45–50分钟。消化期间应定期检查肌肉组织,以避免过度消化。每10分钟用力颠倒消化管10次(避免涡旋震荡)。
- 当肌肉开始松散并可见肌纤维时,停止消化。
- 消化时间结束时,轻轻振荡样品。
- 为终止消化,将消化悬液小心转移至含有10 mL洗涤液的预热100 mm培养皿中。
注意:避免肌肉过度消化,否则不可避免地会导致分离出过度收缩的肌纤维。通常情况下,按照本方案,纯合突变型小鼠的肌肉消化时间为45分钟,而野生型小鼠肌肉则需要50至55分钟。消化时间需通过实验验证。
- 单根肌纤维的分离
- 首先,在解剖显微镜下用包被的P200移液枪或小孔巴斯德吸管逐个挑取已解离的纤维,将其从100 mm培养皿转移至含有5 mL预热洗涤液的新35 mm培养皿中。
- 为释放更多肌纤维,使用带有大孔径的玻璃移液管,将肌肉在温热的培养基中反复吹打,直至肌纤维通过机械作用脱离。注意不要过度吹打,以免损伤纤维。
- 继续从肌肉中释放肌纤维,直至培养皿中含有适量的肌纤维。如果培养皿在室温下放置超过8分钟,则应停止操作,并在37 °C、5% CO₂条件下至少孵育5分钟。2 重新平衡培养基。
- 在将单个肌纤维转移至培养基之前,将其置于37 °C、5% CO₂条件下孵育。2 在洗涤皿中至少放置 1 小时。这有助于肌纤维适应环境 体外 条件
注意:成年肌纤维对压力的敏感性较低,可清洗约2-3次。然而,在本实验条件下(出生后19天),为避免肌纤维损伤,建议仅进行一次洗涤步骤。因此,操作时应始终注意确保所选肌纤维足够洁净,避免携带碎片或过度收缩的纤维。
- 单根肌纤维培养
- 将单个肌纤维转移至含有适当培养基的新预热培养皿中(高血清培养基以促进卫星细胞活化,参见 图1).
- 在培养48-72小时后,将分离的肌纤维转移至新的包被培养皿中并更换新鲜培养基,以避免因操作过早导致肌纤维过度收缩和损伤。
2. 下游应用:肌纤维交联与免疫荧光
注意:可在特定时间点通过免疫荧光(IF)观察与肌纤维相关的卫星细胞。由于大多数已发表的实验方案均针对成年肌纤维的免疫荧光检测进行了优化,本文提供了一种详细方案,以确保对出生后肌肉分离的肌纤维也能获得可靠结果。
- 肌纤维交联
- 开始前,按照表2中的说明配制所有必需的溶液。
- 用HS预包被与样本数量相同的1.5 mL微量离心管。务必在进行下一步前彻底去除所有HS。由于交联后的纤维比活纤维更坚韧且更难移液,因此请确保每管分别交联约200–300根纤维。
- 在解剖显微镜下,收集所有可视为健康的纤维,转移至微量离心管中,并将管子垂直放置于孵育箱内5分钟,使纤维充分沉降。
- 极其缓慢地移除上清液。
- 向管中加入1 mL 4%多聚甲醛(PFA),在室温下进行纤维交联。操作应轻柔,避免对纤维造成损伤。
- 为防止交联过程中纤维相互缠绕,将管子保持极轻微的振荡10分钟。
- 将管子在室温下垂直静置5分钟,使纤维沉降,随后弃去上清液,确保去除大部分PFA液体。
- 加入1 mL磷酸盐缓冲液(PBS),将管子在室温下垂直放置5分钟,使纤维沉降。
- 移除上清液,并重复洗涤步骤(步骤2.1.8)两次。
- 将交联后的样本置于4 °C保存。
注意:交联的肌纤维可在4 °C保存一周。若在此条件下保存超过一周,将不可避免地导致肌纤维缠绕。
- 免疫荧光染色
- 将含有纤维的管子在室温下静置至少5分钟,以使纤维充分沉降。
- 移除上清液,仅保留少量液体,以确保不丢失任何纤维。
- 加入1 mL含0.5% Triton X-100的PBS,轻柔振荡孵育5分钟。
- 将管子垂直放置5分钟,然后移除上清液。
- 加入1.5 mL PBS,轻柔振荡孵育5分钟。
- 将管子垂直放置5分钟,然后移除上清液。
- 加入1 mL封闭液,在室温下轻柔振荡孵育1小时。
- 将管子垂直放置5分钟,然后移除上清液。
- 用封闭液稀释一抗,加入管中,并在4 °C轻柔振荡过夜孵育(推荐浓度见材料表)。
注意:也可选择在室温下孵育3小时。然而,过夜孵育可获得最佳染色效果。当沉降的纤维体积达到1.5 mL微量离心管的100 µL刻度线时,一抗和二抗的孵育体积应为300 µL。当纤维量较少时,建议使用100–200 µL 的孵育体积。 - 将管子垂直放置5分钟,然后移除上清液。
- 用含0.25% Tween-20的PBS进行3次洗涤,每次加入1 mL溶液,轻柔振荡孵育5分钟,随后静置5分钟。
注意:自此步骤起,所有操作均需避光进行,以防止荧光染料漂白。 - 用封闭液稀释二抗,加入管中 ,在室温下轻柔振荡孵育1小时(具体浓度见材料表)。
- 用含0.1% Tween-20的PBS洗涤两次,每次加入1 mL溶液,轻柔振荡孵育5分钟,随后将管子静置5分钟。
- 移除上清液,加入1 mL DAPI溶液,轻柔振荡孵育5分钟。
- 将管子垂直置于管架中静置5分钟,然后移除上清液。
- 用1 mL PBS洗涤一次,轻柔振荡孵育5分钟,随后将管子置于管架中静置5分钟。
- 移除上清液,保留约50 µL液体体积。
- 荧光标记肌纤维在显微镜载玻片上的封片
- 剪切一个P200移液器吸头,并用封闭液进行包被
注意:为包被吸头,应在吸取纤维前反复吹吸封闭液数次,以防止纤维粘附在吸头壁上。 - 从管中收集纤维,并将其铺展在显微镜载玻片上。
- 在解剖显微镜下,仅利用镜面反射的自然光,使用一个新的(未剪切的)P200移液器吸头将纤维铺展并去除多余液体。
- 将载玻片在避光条件下自然干燥约10–15分钟,直至残留液体极少。
- 在载玻片上滴加封片剂(封片剂的用量应根据盖玻片尺寸调整:对于24 × 40 mm的盖玻片,20 µL已足够),然后缓慢将盖玻片覆盖在含有纤维的区域上。注意避免在盖玻片间产生气泡。
- 轻压盖玻片,使纤维平铺于同一水平面。
- 使用指甲油固定盖玻片边缘。
- 样本可在4 °C保存长达4周。
- 使用共聚焦显微镜采集所需荧光标记肌纤维的图像。
- 剪切一个P200移液器吸头,并用封闭液进行包被
结果
我们通常消化四种不同的肌肉(胫骨前肌、趾长伸肌、Soleus 和 Gastrocnemius),以获得足量的长而有活性的肌纤维,这些肌纤维可在富含生长因子的培养基中存活长达 96 小时(图 4A,B)。只有结构最完整的肌纤维才应转移至培养基中,因为它们能够存活;其余易于鉴别和挑选的肌纤维均需弃去。
当肌纤维被维持在富含生长因子的培养基中时,来自野生型小鼠的卫星细胞开始被激活并增殖,见图1。在培养48小时后,在健康状态下(Lamin Δ8-11 +/+),卫星细胞上调MyoD表达并进行第一次分裂。激活后的Pax7+/MyoD+卫星细胞随后增殖,到培养72小时时,形成与肌纤维结合的细胞聚集体,在96小时时这些聚集体更加明显(图5)。在这些分裂过程中,部分细胞可抑制MyoD的表达,通过自我更新来重新填充干细胞库,而维持MyoD表达的细胞则通过下调Pax7表达而进入分化程序。培养96小时后,卫星细胞簇中可观察到明显表达MyoG的定向前体细胞,这些细胞可进一步分化为新的肌纤维(图1和图6)。值得注意的是,本实验揭示了纯合突变型Lamin Δ8-11小鼠(-/-)的卫星细胞分化动力学相较于野生型小鼠(+/+)存在延迟,见图6。
每次单次实验的最终结果使我们相信,针对这种重度肌营养不良模型所开发的单个肌纤维分离与培养方案,能够为后续所有应用提供高质量的肌纤维。

图1:悬浮肌纤维中模拟的卫星细胞再生阶段的图示。在含丰富生长因子的培养基中培养48小时后,Pax7+细胞被激活并进行第一次分裂,形成一对Pax7+/MyoD+细胞。随后,MyoD阳性的细胞增殖并扩增,在培养72小时后形成由单个卫星细胞衍生出的多细胞簇。在培养96小时后,Pax7+/MyoD+细胞转变为正在分化的Pax7-/MyoG+细胞。在扩增阶段,一部分Pax7+/MyoD+细胞下调MyoD的表达,进入自我更新并恢复静息状态。 请点击此处查看该图的放大版本。
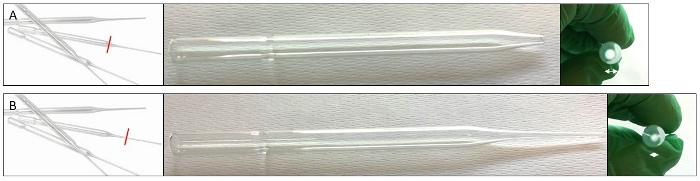
图 2:烧制巴斯德吸管尖端的制备。(A)大孔径吸管尖端应呈现的纵向和正面视图。(B)小孔径吸管尖端最终应呈现的纵向和正面视图。请点击此处查看此图的放大版本。

图3:单块肌肉解剖的代表性图像。(A)胫骨前肌的分离。避免去除覆盖在肌肉表面的薄层组织,以保护内部的肌纤维。(B)胫骨前肌和趾长伸肌一起被分离,仍附着于髌骨水平的上端肌腱。(C)分离后沿纵轴切割,将胫骨前肌与趾长伸肌分开。请点击此处查看该图的放大版本。

图 4:健康且存活的肌纤维示例。 悬浮状态下存活肌纤维的代表性相差显微图像。(A)红色箭头指示一条具有可见肌节结构且侧面附有卫星细胞的肌纤维;橙色箭头指示第一皿中在最终筛选培养前存在的部分断裂肌纤维碎片及细胞碎片。比例尺为 100 µm。(B)在较低放大倍数下观察其他肌纤维的更完整视野。比例尺为 500 µm。 请点击此处查看该图的放大版本。
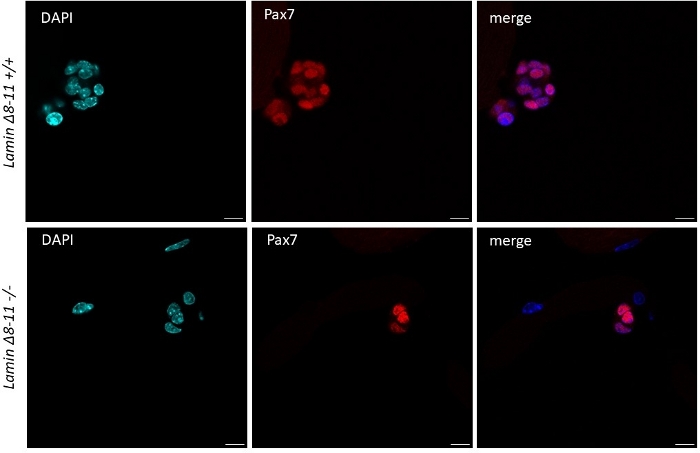
图 5:野生型与突变型小鼠中干细胞簇尺寸的差异。对培养 96 小时后提取自 19 天龄 Lamin Δ8-11 小鼠(+/+ 和 -/-)的肌纤维进行免疫荧光染色。图中显示 Pax7+ 卫星细胞。大多数情况下,Lamin Δ8-11 +/+ 小鼠的细胞簇尺寸在细胞数量上显著大于 Lamin Δ8-11 -/- 小鼠。比例尺为 10 µm。请点击此处查看该图的放大版本。

图 6:代表性免疫荧光实验。对培养 96 小时后从 19 天龄 Lamin Δ8-11 小鼠(+/+ 和 -/-)分离的肌纤维进行免疫荧光实验。观察到 Pax7+/MyoG-(红色)和 Pax7-/MyoG+(绿色)细胞。图像由共聚焦显微镜获取。比例尺为 25 µm。请点击此处查看该图的放大版本。
| 文中溶液名称 | 成分 | 百分比 | 建议最终体积/样本 | 备注 | |
| 洗涤液 | DMEM 高糖 | 90% | 4 mL | 保持无菌,使用前保存于 4°C | |
| 马血清 (HS) | 10% | ||||
| 消化液 | DMEM 高糖 | 9.80% | 20 mL | 粉末有极高危害性。用 0.22µm 滤器过滤溶液后保持无菌,使用前保存于 4°C | |
| 胶原酶 I | 0.20% | ||||
| 培养基 | DMEM 高糖 | 78% | 10 mL | 保持无菌,使用前保存于 4°C | |
| 胎牛血清 (FBS) | 20% | ||||
| 鸡胚提取物 (CEE) | 1% | ||||
| 青霉素-链霉素 (P/S) | 1% | ||||
表1:第1节中所用溶液的配制方法。
| 文中溶液名称 | 组分 | 百分比 | 建议最终体积/样品 | 备注 | |
| 4% PFA | 多聚甲醛(PFA) | 4% | 2–3 mL | 粉末及其溶液均有极高毒性 | |
| PBS | 96% | ||||
| 0.5% Triton X-100 | Triton X-100 | 0.50% | 2–3 mL | Triton X-100 极其黏稠,建议剪去移液器吸头尖端以方便分装 | |
| PBS | 99.50% | ||||
| 0.25% Tween-20 | Tween-20 | 0.25% | 10 mL | Tween-20 极其黏稠,建议剪去移液器吸头尖端以方便分装 | |
| PBS | 99.75% | ||||
| 0.1% Tween-20 | Tween-20 | 0.10% | 10 mL | Tween-20 极其黏稠,建议剪去移液器吸头尖端以方便分装 | |
| PBS | 99.90% | ||||
| 封闭液 | 胎牛血清(FBS) | 10% | 10 mL | 现配现用,4°C 保存不超过 3 周(使用前务必检查溶液是否澄清) | |
| PBS | 90% | ||||
| DAPI | DAPI | 0.10% | 2–3 mL | 避光保存 | |
| PBS | 99.90% | ||||
表2:第2节中所用溶液的配制方法。
讨论
分离完整的单个肌纤维是肌发生研究领域中的一项基本方法,主要用于在健康和病理条件下,表征肌肉干细胞在其微环境中的细胞自主再生能力。然而,当研究目标为生化或基因组学分析时,采用流式细胞术(FACS)分离的卫星细胞可能是更佳选择。
单根肌纤维分离技术能够以最接近生理条件的方式,在体外追踪单个卫星细胞在肌肉再生过程中所经历的各个阶段的动态变化,包括:激活、细胞分裂(不对称和对称分裂)、分化以及通过自我更新返回静息状态。当肌纤维在悬浮条件下培养时,其上的单个卫星细胞会被激活并增殖,形成由同一个卫星细胞衍生而来的细胞簇。随后,通过增殖、分化、激活或干性标志物的免疫荧光分析,可精确量化不同细胞阶段的比例。
在本实验方案中,获得可存活且完整的肌纤维的关键步骤是快速而轻柔地进行肌肉解剖,通过肌腱到肌腱的完整分离,以避免任何肌肉损伤。建议仅使用锋利的剪刀和小型尖头镊子,并将整个肌肉解剖过程控制在十分钟以内。当难以分离非常小的肌肉(如趾长伸肌EDL和胫前肌TA)时,可先将其一并剪下,再用精细剪刀沿肌纤维走向的纵切面将其分开。该策略最终可能获得较少完整度的肌纤维,但不会影响其存活能力。对于较大的肌肉(如Gastrocnemius),也应采用相同方法处理,以利于后续消化。消化时间的优化需通过实验经验验证,同时尽量减少对分离后肌纤维的操作,这两点也是确保后续分析成功的关键因素。
本方案的一个优势在于,即使对于体型微小(年龄和尺寸均较小)且肌肉极为脆弱的小鼠,该方法仍然适用。尽管上文未提及,但可以按照本方案进行解剖,随后将存活的肌纤维在经基底膜包被的培养皿中进行较长时间的培养18,19。需要注意的是,这种情况与漂浮培养条件完全不同,因为在后者中缺乏黏附刺激和邻近刺激。
致谢
感谢Andrea Bianchi、意大利Laminopathies研究网络以及实验室全体成员提供的支持和所有建设性意见。我们非常感谢Chiara Cordiglieri在共聚焦显微镜使用过程中提供的宝贵帮助 。作者感谢Beatrice Biferali博士在制备图示图片方面给予的帮助。本研究工作得到了意大利癌症研究协会(AIRC)青年基金项目18535号、AFM-Telethon项目21030号、意大利卫生部项目GR-2013-02355413号以及Cariplo基金会2017-0649号项目对C.L.的资助。C.M.的研究由意大利癌症研究协会(AIRC)青年基金项目18993号和AFM-Telethon项目22489号资助支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 4′,6-二脒基-2-苯基吲哚 | Sigma | D9542 | |
| 鸡胚提取物 | Seralab | CE650-DL | |
| I型胶原酶 | SIGMA | C0130-500MG | |
| 驴抗兔488抗体 | Thermofisher | R37118 | 使用稀释比例为1:200 |
| 杜尔贝科改良伊格尔培养基 | Gibco | 10569-010 | |
| 胎牛血清 | Corning | 35-015-CV | |
| 马血清 | Gibco | 26050-088 | |
| MyoG抗体 | Millipore | 219998 | 使用稀释比例为1:100 |
| 多聚甲醛 | SIGMA | P6148 | |
| Pax7抗体 | 发育研究 杂交瘤库 | 使用稀释比例为1:20 | |
| 青霉素和链霉素 | Euroclone | ECB3001D | |
| 磷酸盐缓冲液 | Euroclone | ECB4004L | |
| ProLong Gold抗荧光淬灭封片剂 | Thermofisher | P36930 | |
| 吐温X-100 | SIGMA | T8787 | |
| 吐温-20 | SIGMA | P1379 | |
| 实验设备 | 制造商 | ||
| 本生灯 | |||
| 共聚焦显微镜 | Leica | ||
| 金刚石刻划笔 | bio-optica | ||
| 解剖针 | |||
| FACS聚丙烯管 | Falcon | ||
| Falcon管(50 mL和15 mL) | Falcon | ||
| 玻璃盖玻片 | Thermofisher | ||
| 玻璃巴斯德移液管(22 cm) | VWR | ||
| 玻璃载玻片 | Thermofisher | ||
| 微型解剖剪刀 | |||
| 微量移液器(1 mL和200 µL) | Gilson | ||
| 微量移液器吸头 | Corning | ||
| 培养皿(直径100 mm和35 mm) | Thermofisher | ||
| 塑料移液管(5 mL和10 mL) | VWR | ||
| 橡胶吸液球 | VWR | ||
| 尖头镊子 | |||
| 带透射照明的体视解剖显微镜 | Leica | ||
| 组织培养超净台或层流柜 | |||
| 组织培养孵箱(加湿,37°C,5% CO2) | |||
| 37°C水浴锅 | VWR |
参考文献
- Wang, Y. X., Dumont, N. A., Rudnicki, M. A. Muscle stem cells at a glance. Journal of Cell Science. 127 (21), 4543-4548 (2014).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Current Opinion in Cell Biology. 19 (6), 628-633 (2007).
- Zammit, P. S., Partridge, T. A., Yablonka-Reuveni, Z. The Skeletal Muscle Satellite Cell: The Stem Cell That Came in From the Cold. Journal of Histochemistry & Cytochemistry. 54 (11), 1177-1191 (2006).
- Franco, I., et al. Somatic mutagenesis in satellite cells associates with human skeletal muscle aging. Nature Communications. 9 (1), 800(2018).
- Cosgrove, B. D., et al. Rejuvenation of the muscle stem cell population restores strength to injured aged muscles. Nature Medicine. 20 (3), 255-264 (2014).
- Bernet, J. D., et al. p38 MAPK signaling underlies a cell-autonomous loss of stem cell self-renewal in aged skeletal muscle. Nature Medicine. 20 (3), 265-271 (2014).
- Bianchi, A., et al. Dysfunctional polycomb transcriptional repression contributes to lamin A/C-dependent muscular dystrophy. Journal of Clinical Investigation. 130 (5), 2408-2421 (2020).
- Blau, H. M., Webster, C., Pavlath, G. K. Defective myoblasts identified in Duchenne muscular dystrophy. Proceedings of the National Academy of Sciences. 80 (15), 4856-4860 (1983).
- Jiang, C., et al. Notch signaling deficiency underlies age-dependent depletion of satellite cells in muscular dystrophy. Disease Models & Mechanisms. 7 (8), 997-1004 (2014).
- Vallejo, D., et al. PITX2 Enhances the Regenerative Potential of Dystrophic Skeletal Muscle Stem Cells. Stem Cell Reports. 10 (4), 1398-1411 (2018).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal Muscle Satellite Cells: Background and Methods for Isolation and Analysis in a Primary Culture System. Methods in Molecular Biology. (798), 21-52 (2012).
- Sacco, A., Doyonnas, R., Kraft, P., Vitorovic, S., Blau, H. M. Self-renewal and expansion of single transplanted muscle stem cells. Nature. 456 (7221), 502-506 (2008).
- Bischoff, R. Proliferation of muscle satellite cells on intact myofibers in culture. Developmental Biology. 115 (1), 129-139 (1986).
- Rosenblatt, J. D., Lunt, A. I., Parry, D. J., Partridge, T. A. Culturing satellite cells from living single muscle fiber explants. In Vitro Cellular & Developmental Biology - Animal. 31 (10), 773-779 (1995).
- Shefer, G., Yablonka-Reuveni, Z. Isolation and Culture of Skeletal Muscle Myofibers as a Means to Analyze Satellite Cells. Methods in Molecular Biology. (290), 281-304 (2005).
- Anderson, J. E., Wozniak, A. C., Mizunoya, W. Single Muscle-Fiber Isolation and Culture for Cellular, Molecular, Pharmacological, and Evolutionary Studies. Methods in Molecular Biology. 798, 85-102 (2012).
- Verma, M., Asakura, A. Efficient Single Muscle Fiber Isolation from Alcohol-Fixed Adult Muscle following β-Galactosidase Staining for Satellite Cell Detection. Journal of Histochemistry & Cytochemistry. 59 (1), 60-67 (2011).
- Keire, P., Shearer, A., Shefer, G., Yablonka-Reuveni, Z. Isolation and Culture of Skeletal Muscle Myofibers as a Means to Analyze Satellite Cells. Methods in Molecular Biology. 946 (206), 431-468 (2013).
- Pasut, A., Jones, A. E., Rudnicki, M. A. Isolation and Culture of Individual Myofibers and their Satellite Cells from Adult Skeletal Muscle. Journal of Visualized Experiments. (73), e50074(2013).
- Gallot, Y., Hindi, S., Mann, A., Kumar, A. Isolation, Culture, and Staining of Single Myofibers. Bio-Protocol. 6 (19), 1942(2016).
- Liu, L., Cheung, T. H., Charville, G. W., Rando, T. A. Isolation of skeletal muscle stem cells by fluorescence-activated cell sorting. Nature Protocols. 10 (10), 1612-1624 (2015).
- Machado, L., et al. In Situ Fixation Redefines Quiescence and Early Activation of Skeletal Muscle Stem Cells. Cell Reports. 21 (7), 1982-1993 (2017).
- Lucini, F., Bianchi, A., Lanzuolo, C. Formaldehyde-mediated snapshot of nuclear architecture. Methods in Molecular Biology. , (2020).
- Sullivan, T., et al. Loss of a-Type Lamin Expression Compromises Nuclear Envelope Integrity Leading to Muscular Dystrophy. The Journal of Cell Biology. 147 (5), 913-920 (1999).
重印与许可
