我们描述了一种高通量比色法,用于检测引起恰加斯病的病原体——克氏锥虫(Trypanosoma cruzi)在其生命周期三个阶段中的β-半乳糖苷酶活性。该方法可简便、快速且可重复地用于筛选具有杀锥虫活性的化合物。
本文内容
摘要
摘要
Trypanosoma cruzi 是恰加斯病(ChD)的致病原,该病是拉丁美洲具有重要公共卫生意义的地方性疾病,由于人口迁移增加,也影响许多非流行国家。此疾病影响近800万人,每年估计新增病例5万例。在20世纪60年代和70年代,两种用于治疗恰加斯病的药物被引入:硝呋莫司和苄硝唑(BZN)。这两种药物在新生儿及疾病急性期均有效,但在慢性期无效,且使用时伴随显著的不良反应。这些事实凸显了迫切需要加强针对T. cruzi的新药研发工作。
T. cruzi 通过猎蝽科和半翅目昆虫的吸血节肢动物媒介传播。进入哺乳动物宿主后,它以内无鞭毛体形式在细胞内增殖,并分化为血液中不复制但具有感染性的锥鞭毛体。在昆虫媒介体内,锥鞭毛体转变为前鞭毛体阶段,并通过二分裂方式进行增殖。
本文介绍了一种基于检测寄生虫裂解后释放到培养液中的胞质β-半乳糖苷酶活性的检测方法,所用底物为氯酚红β-D-半乳吡喃糖苷(CPRG)。为此, T. cruzi Dm28c 菌株转染了过表达 β-半乳糖苷酶的质粒,并用于 体外 在上鞭毛体、无鞭毛体和前鞭毛体阶段进行药物筛选。本文还描述了如何利用参考药物苯硝唑作为示例,测定培养的上鞭毛体、感染无鞭毛体的Vero细胞以及从培养细胞中释放出的前鞭毛体的酶活性。该比色法检测操作简便,可扩展为高通量形式,并适用于其他研究 T. cruzi 菌株。
引言
恰加斯病(ChD),又称美洲锥虫病,是由一种具鞭毛的原生动物克氏锥虫(Trypanosoma cruzi,简称 T. cruzi)引起的寄生虫病。该病最初为无症状或症状轻微的急性期,通常未被诊断,随后进入终身持续的慢性期。在慢性阶段,约30%的患者在感染数十年后出现多种致残性疾病,包括心肌病、巨脏器综合征或两者兼有,死亡率介于0.2%至20%之间1,2,3。无症状的慢性期患者可能无任何临床表现,但终生保持血清学阳性。
据估计,全球约有700万人感染,其中大多数来自恰加斯病(ChD)流行地区的拉丁美洲。T. cruzi 主要通过受感染的吸血锥蝽(媒介传播)传播,较少情况下通过摄入被含有寄生虫的锥蝽粪便污染的食物经口传播2。此外,该寄生虫还可通过胎盘从感染恰加斯病的母亲传给新生儿,或通过输血及器官移植传播。这些非媒介传播途径以及人口迁移促进了该疾病在全球范围内的扩散,北美、欧洲以及部分非洲、东地中海和西太平洋地区的病例数量不断增加即是明证4。恰加斯病被视为一种被忽视的疾病,因为其媒介传播与贫困密切相关,是拉丁美洲低收入国家重要的公共卫生问题。尽管已有可用的治疗方法,但恰加斯病在拉丁美洲导致的死亡率在寄生虫病中居首位,超过疟疾2。
用于治疗恰加斯病(ChD)的两种注册药物于20世纪60年代末和70年代初问世:硝呋莫司(nifurtimox)和苯硝唑(benznidazole)5。这两种药物对成人、儿童及先天感染的新生儿在疾病急性期均有效,对患有慢性感染的儿童也通常可实现治愈。然而,仅有少数患者能被及早诊断并及时接受治疗。根据最新的临床试验结果,这两种药物在成人中存在重要局限性,且在减轻慢性期患者症状方面无效;因此,其在该阶段的使用存在争议。其他缺点还包括需要较长的治疗周期(60–90天)以及频繁出现的严重不良反应,导致部分感染者不得不中断治疗6,7。据估计,不到10%的恰加斯病患者得到了确诊,而能够获得治疗者比例更低,因为许多患者生活在偏远农村地区,难以或无法获得基本医疗保健8。上述情况凸显了迫切需要研发针对T. cruzi的新药物,以实现更高效、安全且适用于现场条件的治疗方案,尤其是针对慢性期的治疗。在此方面,开发更有效化合物的另一挑战在于体外(in vitro)和体内(in vivo)药物疗效评估体系的局限性9。
尽管化学生物学和基因组学方法已被用于鉴定动质体寄生虫中潜在的药物靶点,但目前在动质体寄生虫中可用的基因组工具仍有限 T. cruzi 与……相比存在局限性 T. brucei 或 利什曼原虫因此,筛选具有抗锥虫活性的化合物仍然是寻找抗查加斯病(ChD)新化疗药物候选物最常用的方法。通常,药物发现研究中的 T. cruzi 必须从测试新药在一种动物模型中的作用效果开始 体外 针对上鞭毛体阶段的检测。几十年来,评估候选化合物对上鞭毛体抑制作用的唯一方法是 T. cruzi 采用人工显微镜计数,该方法费时费力,且依赖于操作者。此外,该方法适用于少量化合物的检测,但无法满足对大规模化合物库进行高通量筛选的需求。如今,许多研究始于对来自不同来源的大量化合物进行分析和检测 体外,检测其抑制寄生虫生长的能力。目前已开发出比色法和荧光法以提高此类检测的通量,增强筛选的客观性,并使整个过程更加省力。9.
最常用的比色法之一是基于转染寄生虫的β-半乳糖苷酶活性,该方法最初由Bucknet及其合作者描述10。重组寄生虫表达的β-半乳糖苷酶可水解显色底物氯酚红-β-D-半乳糖吡喃苷(CPRG),生成氯酚红,后者可通过酶标分光光度计轻松进行比色测定。因此,可在微孔板中同时评估并定量多种化合物存在下的寄生虫生长情况。该方法已应用于测试药物对克氏锥虫昆虫媒介阶段的无鞭毛体、鞭毛体以及哺乳动物宿主阶段的细胞内无鞭毛体的作用。此外,已有多种转染了pBS:CL-Neo-01/BC-X-10质粒(pLacZ)10并表达Escherichia coli β-半乳糖苷酶的重组T. cruzi菌株(亦可构建新的菌株),使得能够评估来自不同离散分类单元(DTUs)的寄生虫,这些寄生虫对相同化合物可能表现出不同的反应10,11,12,13。该方法已成功用于低通量和高通量筛选中评估化合物对T. cruzi的活性12,13。类似的方法也已被用于其他原虫寄生虫,包括Toxoplasma gondii和Leishmania mexicana14,15。
本文描述并展示了一种详细的方法 体外 针对全生命周期各阶段的药物筛选 T. cruzi 使用表达β-半乳糖苷酶的寄生虫。本文所示的实验已使用表达β-半乳糖苷酶的 T. cruzi 通过转染获得的细胞系 T. cruzi DTU I 型 Dm28c 菌株13 使用 pLacZ 质粒(Dm28c/pLacZ)。此外,该相同方案可轻松适用于其他菌株,以比较不同化合物之间以及菌株之间的效果 T. cruzi 毒株或离散型单元(DTUs)。
方案
注意:整个实验设计的概述见图1。

图1:使用CPRG作为比色反应底物对Trypanosoma cruzi Dm28c/pLacZ株进行体外筛选检测的总体流程。 该检测包括接种寄生虫(1),用BZN孵育(2和3),然后加入比色底物(4)。当寄生虫裂解时,β-半乳糖苷酶被释放,并将CPRG裂解为氯酚红;该颜色变化可通过分光光度法测定(5)。数据可在统计分析软件中进行分析,以获得BZN的半数抑制浓度(IC50)。缩写:CPRG = 氯酚红 β-D-半乳吡喃糖苷;BZN = 苯硝唑。 请点击此处查看此图的放大版本。
1. 储存液的配制
- 培养基与溶液的制备
- 血红素溶液(补充表 S1)
- 按照配方中列出的顺序,将所有组分加入一个 50 mL 离心管中,并通过反复倒置混匀数次。
- 使用 0.22 µm 滤膜过滤除菌。
- 将溶液分装为每管 1 mL,置于 1.5 mL 微量离心管中,于 -80 °C 保存,直至使用。
- 肝浸液胰蛋白胨培养基(LIT 培养基)(补充表 S1)
- 称取所有组分,加入含有至少 700 mL 蒸馏水的 1 L 烧杯中,在室温下搅拌至均匀溶解。
- 调节 pH 至 7.2,用蒸馏水在 1 L 量筒中定容至 900 mL,通过过滤或高压灭菌(121 °C,20 分钟)进行灭菌。
- 向 900 mL LIT 培养基中添加 100 mL 胎牛血清(FCS)(终浓度为 10% FCS,无菌且经 56 °C 热灭活 45 分钟)、20 mL 40% 无菌葡萄糖溶液(经高压灭菌,121 °C,20 分钟)以及 5 mL 血红素溶液(终浓度为 5 µM),以补充培养基成分。
- 根据制造商说明书,将粉末状 Dulbecco 改良 Eagle 培养基(DMEM)溶解配制。
- 磷酸盐缓冲液(PBS)(补充表 S1)
- 在 1 L 烧杯中,于室温下搅拌使所有固体组分完全溶解。
- 调节 pH 至 7.2,用蒸馏水在 1 L 量筒中定容至 1 L,并通过过滤或高压灭菌(121 °C,20 分钟)进行灭菌。
- 血红素溶液(补充表 S1)
- 苯硝唑(BZN)储备液与稀释液
注:本研究中使用的 BZN 浓度范围为 2.5 至 80 µM。- 通过将 13 mg 药物溶解于 50 µL 二甲基亚砜(DMSO)中,配制 1 M 的 BZN 储备液。在无菌条件下,将该 1 M BZN 储备液用适当培养基稀释为所需终浓度的两倍(2x 溶液),并配制足够覆盖待检测孔数的总体积。
注:每孔按 100 µL 计算,额外增加 10–20% 余量。由于该药物在培养基中溶解度较低,BZN 储备液及所有稀释液必须在实验前立即配制。 - 配制浓度分别为 160、80、40、20、10 和 5 µM 的 2x BZN 稀释液。
- 将 1 M BZN 储备液稀释 100 倍(10 µL 1 M BZN + 990 µL 培养基),获得 10 mM 的溶液,所用培养基应与 T. cruzi 各生活周期阶段相匹配。持续混匀以确保悬浮液均匀。
- 将 10 mM BZN 溶液稀释,配制 320 µM BZN:取 32 µL 10 mM BZN 加入 968 µL 培养基中。持续混匀以确保悬浮液均匀。
- 将 320 µM BZN 溶液进行两倍系列稀释,得到 160 µM 浓度(500 µL 320 µM BZN + 500 µL 培养基)。持续混匀以确保悬浮液均匀。对后续各步稀释液重复此两倍稀释操作,依次获得 80、40、20、10 和 5 µM 的溶液。
- 将 DMSO 用适当培养基稀释 1,000 倍,作为未处理对照组(100% 存活对照)。
注:上鞭毛体可耐受最高 100 倍稀释的 DMSO,而 Vero 细胞仅可耐受最高 1,000 倍稀释的 DMSO。如有需要,可设置含 50% DMSO 的死亡对照组,作为 0% 存活条件。
- 通过将 13 mg 药物溶解于 50 µL 二甲基亚砜(DMSO)中,配制 1 M 的 BZN 储备液。在无菌条件下,将该 1 M BZN 储备液用适当培养基稀释为所需终浓度的两倍(2x 溶液),并配制足够覆盖待检测孔数的总体积。
- 底物溶液
- 将 CPRG 溶解于蒸馏水中,配制成 1 mM 浓度。对于 96 孔板,将 2.4 mg CPRG 加入 4 mL 水中。
注:CPRG 溶液必须在实验前立即配制。
- 将 CPRG 溶解于蒸馏水中,配制成 1 mM 浓度。对于 96 孔板,将 2.4 mg CPRG 加入 4 mL 水中。
- 裂解液
- 在 1× PBS 中配制 2.5% v/v 的非离子型非变性去污剂 2-[4-(2,4,4-三甲基戊烷-2-基)苯氧基]乙醇溶液(参见材料表),每 96 孔板配制 1 mL,实验前立即配制。
2. 寄生虫培养物制备
- 上鞭毛体准备
注意:T. cruzi Dm28c/pLacZ 菌株13 在本报告中全程使用。- 将表达 β-半乳糖苷酶的 T. cruzi 上鞭毛体在 28 °C 条件下于细胞培养瓶(培养面积为 25 cm2,即 T-25 培养瓶)中无细胞培养基中培养。使用补充了 10% 胎牛血清(FCS)(补充表 S1)和硫酸遗传霉素(G418)至终浓度为 200 µg/mL 的 LIT 培养基维持培养物,并每 48–72 小时(每次传代体积为 5 mL)传代一次,以保持其处于对数生长期。传代前使用血球计数板在 Neubauer 计数室中定量寄生虫生长情况。将培养瓶盖紧(非通气盖),垂直置于 28 °C 培养箱中培养。
注意:G418 可确保 pLacZ 质粒的选择与维持。对数生长期培养物中 Dm28c/pLacZ 菌株的上鞭毛体浓度为 1–5 × 10⁷ 个寄生虫/mL。 - 从对数生长期培养物中制备含 2 × 10⁵ 个上鞭毛体/mL 的悬液(使用补充了 G418 抗生素的 LIT 培养基)。向 96 孔微孔板的每孔中加入 100 µL 上鞭毛体悬液(每 100 µL LIT 中含 20,000 个上鞭毛体),再向每孔补充培养基至终体积为 200 µL。
- 将表达 β-半乳糖苷酶的 T. cruzi 上鞭毛体在 28 °C 条件下于细胞培养瓶(培养面积为 25 cm2,即 T-25 培养瓶)中无细胞培养基中培养。使用补充了 10% 胎牛血清(FCS)(补充表 S1)和硫酸遗传霉素(G418)至终浓度为 200 µg/mL 的 LIT 培养基维持培养物,并每 48–72 小时(每次传代体积为 5 mL)传代一次,以保持其处于对数生长期。传代前使用血球计数板在 Neubauer 计数室中定量寄生虫生长情况。将培养瓶盖紧(非通气盖),垂直置于 28 °C 培养箱中培养。
- 无鞭毛体准备
- 使用来自陈旧上鞭毛体培养物(本方案中培养 7 天)自发产生的循环型前鞭毛体,对已接种了 2 × 10⁵ 个 Vero 细胞(使用补充了 2% FCS 的 DMEM 培养基)的 T-25 培养瓶进行初始感染。
- 在 Neubauer 计数室中计数循环型前鞭毛体数量,以感染复数(MOI)为 10 的比例,用 5 mL 含 2% FCS 的 DMEM 培养基感染 Vero 细胞单层,于 37 °C、5% CO2 条件下孵育 16 小时。用 5 mL 无菌移液管吸除培养瓶中的培养基以洗去未结合的前鞭毛体,随后加入 5 mL 1× PBS 洗涤并吸除。最后加入 5 mL 含 2% FCS 的 DMEM 培养基,并在相同条件下继续孵育。
- 利用从感染后的 Vero 细胞单层中释放出的前鞭毛体,在含 2 × 10⁵ 个 Vero 细胞(使用含 2% FCS 的 DMEM 培养基)的 T-25 培养瓶中维持感染,每周建立一个新的感染培养瓶。
注意:感染后 5–7 天,前鞭毛体开始从细胞中释放并可在上清液中观察到。用于感染细胞或已感染细胞的培养体系中不得添加 G418,因为 Vero 细胞系对 G418 不具抗性。
- 使用补充了 2% FCS 的 DMEM 培养基制备含 1 × 10⁵ 个 Vero 细胞/mL 的细胞悬液,每孔加入 100 µL 至 96 孔组织培养板中(每孔 10,000 个细胞)。于 37 °C、5% CO2 条件下孵育过夜(12–16 小时),以确保细胞充分贴壁。
- 过夜孵育后,用 100 µL 无菌 1× PBS 对 Vero 细胞单层清洗三次。每孔加入 T. cruzi Dm28c/pLacZ 前鞭毛体(来自前一步骤 2.2.1 中 T-25 培养瓶的感染产物),以 MOI 为 10 的比例加入 100 µL 含 2% FCS 的 DMEM 培养基(每孔含 100,000 个前鞭毛体)。
- 将培养板于 37 °C、5% CO2 条件下孵育 6 小时。孵育结束后,用 1× PBS 洗涤两次,每孔加入 100 µL 不含酚红的 DMEM 培养基,并补充 2% FCS。
注意:感染后 48 小时(即感染后第 2 天),可在光学显微镜下观察到细胞质内的无鞭毛体。DMEM 及其他细胞培养基中的酚红是一种 pH 指示剂,可能干扰 CPRG 的吸光度测定。若无法获得不含酚红的 DMEM,可参见下文第 3.2.1 节中提到的替代方案。
- 使用来自陈旧上鞭毛体培养物(本方案中培养 7 天)自发产生的循环型前鞭毛体,对已接种了 2 × 10⁵ 个 Vero 细胞(使用补充了 2% FCS 的 DMEM 培养基)的 T-25 培养瓶进行初始感染。
- 前鞭毛体准备
- 使用补充了 2% FCS 的 DMEM 培养基制备含 1 × 10⁶ 个 Vero 细胞/mL 的细胞悬液,向 T-25 培养瓶中每瓶接种 800,000 个细胞(5 mL 培养基)。于 37 °C、5% CO2 条件下孵育过夜(12–16 小时),以确保细胞贴壁。
注意:对于 T-75 培养瓶,接种 2 × 10⁶ 个细胞,终体积为 15 mL。 - 孵育后,用 3 mL 无菌 1× PBS 清洗两次。每瓶加入 T. cruzi Dm28c/pLacZ 前鞭毛体,以 MOI 为 10 的比例加入 5 mL 含 2% FCS 的 DMEM 培养基(T-25 培养瓶中加入 8 × 10⁶ 个前鞭毛体)。
注意:对于 T-75 培养瓶,加入 20 × 106 个前鞭毛体,终体积为 15 mL 含 2% FCS 的 DMEM 培养基。 - 于 37 °C、5% CO2 条件下孵育过夜(12–16 小时)。用 3 mL 1× PBS 洗涤两次,加入 5 mL 新鲜的含 2% FCS 的 DMEM 培养基。继续在 37 °C、5% CO2 条件下孵育四天。
- 在光学显微镜下检查上清液中是否存在前鞭毛体。使用 Neubauer 计数室对前鞭毛体进行计数。将上清液收集至 15 mL 离心管中,室温下以 7,000 × g 离心 10 分钟。
- 弃去上清液,将沉淀重悬,获得浓度为 1 × 10⁶ 个前鞭毛体/mL 的悬液(使用不含酚红并补充了 2% FCS 的 DMEM 培养基)。向 96 孔板每孔加入 100 µL 前鞭毛体悬液(每孔含 100,000 个前鞭毛体)。
注意:若无法获得不含酚红的 DMEM,可参见下文第 3.2.1 节中提到的替代方案。
- 使用补充了 2% FCS 的 DMEM 培养基制备含 1 × 10⁶ 个 Vero 细胞/mL 的细胞悬液,向 T-25 培养瓶中每瓶接种 800,000 个细胞(5 mL 培养基)。于 37 °C、5% CO2 条件下孵育过夜(12–16 小时),以确保细胞贴壁。
3. β-半乳糖苷酶检测
注意:β-半乳糖苷酶活性的定量被用作确定寄生虫数量的间接方法。预计在存在杀锥虫化合物的情况下,寄生虫生长将受到抑制,与未处理对照组相比寄生虫数量减少,这将反映为β-半乳糖苷酶活性降低,因而吸光度也较低。
- 用BZN孵育寄生虫。
- 在96孔板中,向每孔加入100 µL相应的2× BZN溶液,使最终BZN浓度达到80、40、20、10、5和2.5 µM,分别作用于100 µL的上鞭毛体悬液(来自步骤2.1)、感染后2天的Vero细胞内的无鞭毛体(步骤2.2)或前鞭毛体(步骤2.3)。
- 将上鞭毛体在28 °C下孵育72小时,将前鞭毛体或含有无鞭毛体的感染Vero细胞在37 °C、5% CO2条件下孵育24小时。
注意:每个药物浓度至少应设三个复孔,并设置含DMSO的上鞭毛体、前鞭毛体和感染Vero细胞的对照培养组(见步骤1.2.2.4)。
- 比色反应
- 处理孵育结束后,若感染的Vero细胞或前鞭毛体使用含酚红的DMEM培养基,则更换为100 µL的1× PBS,以避免干扰。同时设置三个仅含100 µL相应培养基(或根据情况使用1× PBS)的空白孔。
注意:若上鞭毛体使用LIT培养基或不含酚红的DMEM,则无需更换培养基。也可继续使用含酚红的DMEM,但需单独设置仅含DMEM的空白孔以测定基础吸光度,并在数据分析时(步骤3.3)扣除该值。Schneider昆虫培养基无色,可作为上鞭毛体的替代培养基。 - 向每孔加入40 µL CPRG底物溶液和10 µL去垢剂溶液,使每孔终体积为250 µL,CPRG终浓度为200 µM,去垢剂终浓度为0.1%。
注意:CPRG溶液和去垢剂可合并为50 µL总体积加入每孔。 - 在37 °C孵育2小时,使用酶标仪在595 nm波长下测定吸光度。
注意:β-半乳糖苷酶催化裂解后,预期颜色变化为由黄色变为红褐色(图2A)。孵育时间可延长至4小时,氯酚红的吸收光谱可在570–595 nm范围内读取,曲线拟合结果相似(补充图S1A,B)。在CPRG底物存在下孵育长达24小时也显示相似的曲线拟合结果(补充图S1C)。- 在配备单色器选择器的酶标仪中,于仪器软件中创建新实验方案(补充图S2)。
- 点击吸光度作为检测方式 | 终点法作为读数类型 | 确定(补充图S2A)。添加读板步骤,输入选定波长,点击确定(补充图S2B)。
- 在板型设置部分标记待读取的孔位并点击确定(补充图S2C)。将微孔板放入托盘,点击读板,等待数值显示在屏幕上(补充图S2D),然后导出至电子表格以进行结果分析。
- 处理孵育结束后,若感染的Vero细胞或前鞭毛体使用含酚红的DMEM培养基,则更换为100 µL的1× PBS,以避免干扰。同时设置三个仅含100 µL相应培养基(或根据情况使用1× PBS)的空白孔。
- 数据分析与半数抑制浓度(IC50)计算
- 扣除空白对照的测定值,该值对应仅含LIT培养基、1× PBS或含/不含酚红的DMEM,以及CPRG-去垢剂溶液。当测试有色化合物的抗锥虫活性时,需额外测定各药物浓度下仅含LIT或DMEM的空白对照吸光度,并从各浓度下寄生虫的吸光度值中扣除相应数值。
注意:补充表S2展示了本实验中无寄生虫时各培养基与CPRG-去垢剂溶液组合的典型测定值。加入CPRG前后差异显著,但不会干扰寄生虫实验结果(补充表S2)。 - 在统计分析软件中,以BZN浓度(µM)为横坐标,595 nm吸光度为纵坐标绘制xy散点图。点击分析按钮,选择转换选项 | 选择对x值进行x=log(x)转换,点击确定,将BZN浓度转换为对数值。
- 从统计分析软件中获取IC50值。
注意:IC50定义为与未处理对照组相比,使寄生虫生长减少50%的药物浓度,通过拟合曲线的S型函数拐点计算得出。- 在统计分析软件中点击分析按钮,在xy分析列表中选择非线性回归(曲线拟合),点击确定。
- 在参数窗口的模型选项卡中,在内置方程的剂量-反应-抑制组中选择剂量-反应法:log(抑制剂) vs. 反应 - 可变斜率(四参数)。其余选项保持默认设置,点击确定。
- 点击统计分析软件的结果部分,查看IC50值、标准差(SD)以及拟合优度。
- 点击图表部分,查看药物对数浓度与吸光度的xy图。注意拟合曲线将以不同颜色显示。
注意:可访问 https://www.aatbio.com/tools/ic50-calculator 获取免费的在线IC50计算工具。
- 扣除空白对照的测定值,该值对应仅含LIT培养基、1× PBS或含/不含酚红的DMEM,以及CPRG-去垢剂溶液。当测试有色化合物的抗锥虫活性时,需额外测定各药物浓度下仅含LIT或DMEM的空白对照吸光度,并从各浓度下寄生虫的吸光度值中扣除相应数值。
结果
按照上述方案,将表达β-半乳糖苷酶的Dm28c无鞭毛体与6种浓度的BZN(2.5、5、10、20、40、80 µM)(或待测化合物)在37°C下孵育72小时。孵育结束后,加入CPRG试剂和去污剂,后者可裂解细胞并释放β-半乳糖苷酶。β-半乳糖苷酶可切割CPRG生成氯酚红,导致溶液颜色由黄色变为红褐色(图2A)。2小时后,使用酶标仪在595 nm波长处测定氯酚红的吸光度。以BZN的对数浓度为横坐标,595 nm处的吸光度为纵坐标绘制XY曲线图,并采用非线性回归拟合曲线(图2B)。在本实验中,无鞭毛体的IC50值为20.59 ± 1.075 µM,与文献报道结果相似(表I)16,17。此前已有研究报道该方法在动基体和无鞭毛体中的代表性结果13。
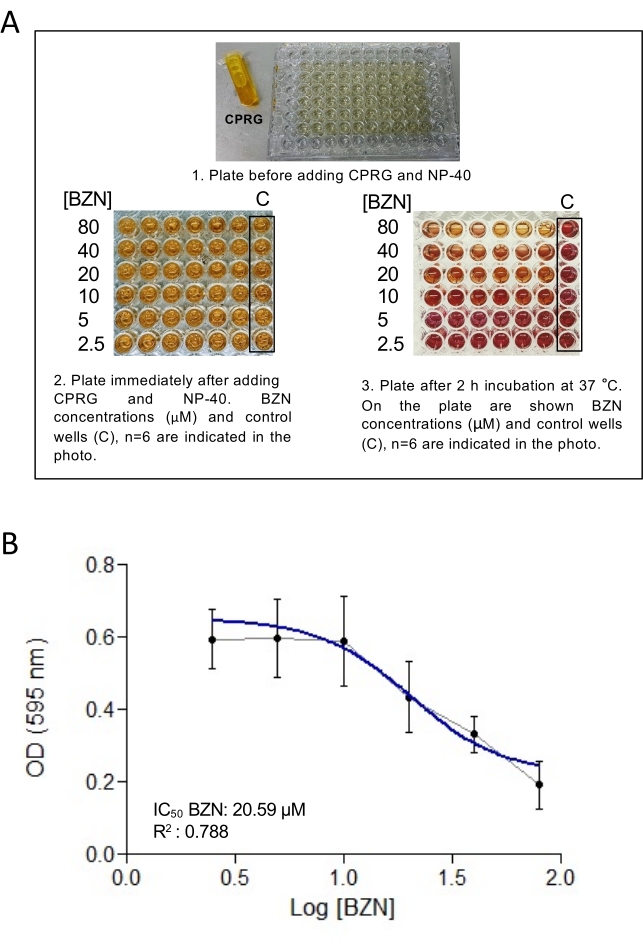
图2:BZN对Dm28c无鞭毛体形式的IC50值计算。(A)96孔板中,Dm28c无鞭毛体经不同浓度BZN(2.5、5、10、20、40和80 µM)处理后,在加入CPRG前(1)、初次加入CPRG和去污剂后(2),以及与CPRG和去污剂孵育后显示颜色变化(3)。(B)Dm28c/pLacZ无鞭毛体在595 nm处的BZN对数浓度与吸光度(OD)的XY图。采用非线性回归拟合曲线以估算IC50值。每个数据点表示6次独立生物学重复的平均值及标准差(误差线)。蓝色实线代表拟合曲线。缩写:CPRG = 氯酚红-β-D-半乳糖吡喃苷;BZN = 苄硝唑;OD = 光密度;C = 对照。 请点击此处查看该图的放大版本。
| 使用表达β-半乳糖苷酶的Dm28c株计算的BZN IC50(μM) | 文献报道的BZN IC50(μM) | |
| 无鞭毛体 | 17.08 至 20.59 | 11 至 18.72 |
| 前鞭毛体 | 2.31 至 3.92 | 1.66 至 4.39 |
| 动鞭毛体 | 27.07 至 44.74 | 24.68 至 50.72 |
表1:使用本方案获得的上鞭毛体、锥鞭毛体和无鞭毛体的IC50值范围,与文献报道的IC50值比较17,18。
补充图 S1:读取吸光度时酶标仪软件的设置。 请点击此处下载该文件。
补充图S2:利用Dm28c/pLacZ品系上鞭毛体进行的β-半乳糖苷酶活性检测(570至595 nm处的光密度) 克氏锥虫 在不同时间点与CPRG孵育后。 数据以三次独立重复实验的均值和标准差表示。彩色实线代表曲线拟合结果。A孵育 200 µM CPRG 孵育 2 小时。B) 孵育处理 200 µM CPRG 孵育 4 小时。C不同时间点(2、4 和 24 小时)的 β-半乳糖苷酶活性(570 nm 处的光密度)示意图。缩写:CPRG = 氯酚红-β-D-半乳糖吡喃苷。 请点击此处下载此文件。
补充表 S1:LIT 培养基、血红素和 PBS 的成分与配制方法。 缩略语:LIT = 肝浸液胰蛋白胨;PBS = 磷酸盐缓冲液。请点击此处下载该表格。
补充表 S2:不含寄生虫的 LIT 和 DMEM 培养基的吸光度读数。数值以每种培养基的三个重复表示;培养基行包含三个重复的平均值;SD行包含重复的标准偏差值。缩写:SD = 标准偏差;LIT = 肝浸液胰蛋白胨培养基;DMEM = 达尔伯克改良伊格尔培养基。请点击此处下载该表格。
讨论
本文介绍了一种基于检测细胞膜裂解后释放的胞质β-半乳糖苷酶活性的检测方法,该方法适用于在底物CPRG存在下裂解T. cruzi无鞭毛体、上鞭毛体或含有无鞭毛体的感染细胞。我们使用了T. cruzi Dm28c/pLacZ寄生虫,这是一种通过转染携带β-半乳糖苷酶的质粒而获得的稳定寄生虫株,该质粒由Buckner及其合作者构建10。该检测方法已被用于筛选抗锥虫化合物12,19,20,21。本研究采用T. cruzi Dm28c/pLacZ菌株优化了筛选方案。如图1所示,该方案包含四个主要步骤:第一步是在96孔板中接种寄生虫。上鞭毛体和无鞭毛体从悬浮液中计数后进行接种;对于无鞭毛体,则首先接种Vero细胞以形成贴壁单层,随后用上鞭毛体感染。感染48小时后,细胞内即可出现无鞭毛体。第二步是将待测药物配制成所需浓度的系列稀释液,并与寄生虫共同孵育。第三步是加入CPRG和去垢剂以裂解细胞。当β-半乳糖苷酶从寄生虫胞质中释放后,会切割CPRG生成氯酚红,后者通过分光光度法进行测定。第四步为数据分析,包括绘制x-y图,并对所得曲线进行拟合,以计算目标药物的IC50值。
一个 体外 所有生命周期阶段的检测方法 T. cruzi 是研究潜在新药作用的初始步骤。在这些检测中,通常通过显微镜计数来评估效果,该方法耗时较长且具有主观性,难以实现自动化。采用比色法检测替代该技术可提高筛选的客观性,并显著缩短操作时间。比色法微孔板读数仅需数分钟,而传统人工显微镜计数则需数小时,因此更有利于对具有潜在治疗价值的大量新化合物库进行高通量筛选。关于表达β-半乳糖苷酶的寄生虫(Dm28c/pLacZ)与野生型Dm28c株系的整体相似性,我们确定这些寄生虫形态正常,生长速率相似,并在生活周期各形态中表现出一致的分化能力。此外,通过显微镜计数对野生型Dm28c与Dm28c/pLacZ株系进行药物测试结果的比较显示,两者之间无显著差异13.
本方案的一个局限性在于,有色培养基可能会干扰测定的吸光度。建议使用不含酚红的DMEM(或RPMI)以克服此问题。在本方案中,已成功使用含DMEM的空白孔作为基础吸光度值。另一个局限性是使用有色药物时可能产生的干扰,可通过将含化合物的培养基作为空白对照,或选择570至595 nm之间的吸光度波长以实现最低干扰来克服。CPRG不受特定药物(无论是否有颜色)存在的影响,因此该检测方法具有较强的稳健性。当使用含酚红的培养基或有色药物时,必须为每种条件设置空白对照,并从寄生虫检测结果中减去相应空白对照的吸光度值,以避免任何干扰。
T. cruzi 滋养体和Toxoplasma gondii中报道的CPRG溶液浓度为100 µM10,15。然而,前人报道的上鞭毛体最适浓度为200 µM11。在本研究的Dm28c/pLacZ细胞系中,上鞭毛体、滋养体和无鞭毛体均使用200 µM CPRG溶液,结果稳定可靠。关于CPRG孵育时间,当上鞭毛体与底物溶液孵育2小时时,获得最佳曲线拟合效果(R2 = 0.9995)。然而,在孵育4小时时,R2值也非常接近(R2 = 0.9994),且β-半乳糖苷酶活性在每孔6,250至200,000个上鞭毛体(即62,500–2,000,000个上鞭毛体/mL)范围内呈线性关系(补充图S2)。对于滋养体,报道的线性范围为每孔3,150至100,000个滋养体(即31,500–1,000,000个滋养体/mL)13。为避免出现较大的标准偏差,必须在每个孔中接种适量的寄生虫。由于操作体积较小,接种前对寄生虫进行计数时应保持一致性。此外,如有需要,每个实验条件可设置三个以上的重复孔。
与其他比色筛选实验22不同,本方法无需后续操作步骤,从而提高了实验的可重复性、可靠性和数据采集速度。该实验操作简便、快速且可靠,适用于克氏锥虫病(ChD)治疗候选化合物的高通量药物筛选,并可推广至其他克氏锥虫(T. cruzi)菌株。pLacZ 质粒可向 Bucker 实验室申请获取,可用于转染耐药菌株(例如基因敲除株),以评估不同遗传背景下菌株对各类药物的敏感性。唯一需要注意的关键点是,基因敲除质粒所携带的抗生素抗性标记应与 pLacZ 不同。
披露
作者声明无利益冲突。
致谢
我们感谢Buckner博士慷慨提供pLacZ质粒。本工作由阿根廷国家科学技术促进局、阿根廷生产性科学与创新部(PICT2016-0439、PICT2019-0526、PICT2019-4212)以及英国研究理事会 [MR/P027989/1] 提供资助。图1(Figure 1)的制作使用了Servier医学艺术资源(https://smart.servier.com)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 L 烧杯 | Schott Duran | 10005227 | |
| 10 mL 血清移液管,无菌 | Jet Biofil | GSP211010 | |
| 5 mL 血清移液管,无菌 | Jet Biofil | GSP010005 | |
| 96 孔板 | Corning | 3599 | |
| 苯并咪唑 | Sigma Aldrich | 419656 | N-苄基-2-硝基-1H-咪唑-1-乙酰胺 |
| 生物安全柜 | Telstar | Bio II A/P | |
| 15 mL 圆底离心管,无菌 | Tarson | 546021 | |
| 50 mL 圆底离心管,无菌 | Tarson | 546041 | |
| CO2 培养箱 | Sanyo | MCO-15A | |
| CPRG | Roche | 10 884308001 | 氯酚红-β-D-半乳吡喃糖苷 |
| DMEM,高糖 | Thermo Fisher Scientific | 12100046 | 粉末 |
| DMSO | Sintorgan | SIN-061 | 二甲基亚砜 |
| 胎牛血清 | Internegocios SA | FCS FRA 500 | 无菌且经热灭活 |
| G418 硫酸盐溶液 | Roche | G418-RO | 储存浓度:50 mg/mL |
| 葡萄糖 D(+) | Cicarelli | 716214 | |
| 量筒 | Nalgene | 3663-1000 | |
| 血红素 | Frontier Scientific | H651-9 | |
| KCl | Cicarelli | 867212 | |
| 肝脏浸出液 | Difco | 226920 | |
| 1.5 mL 微量离心管 | Tarson | 500010-N | |
| 微孔板分光光度计 | Biotek | Synergy HTX | |
| Na2HPO4 | Cicarelli | 834214 | |
| NaCl | Cicarelli | 750214 | |
| 血细胞计数板 | Boeco | BOE 01 | |
| Nonidet P-40 | Antrace | NIDP40 | 2-[4-(2,4,4-三甲基戊烷-2-基)苯氧基]乙醇 |
| Prism | Graphpad | 统计分析软件 | |
| 碳酸氢钠 | Cicarelli | 929211 | NaHCO3 |
| Sorvall ST 16 离心机 | Thermo Fisher Scientific | 75004380 | |
| T-25 培养瓶 | Corning | 430639 | |
| 胰蛋白胨 | Merck | 1106760500 | |
| Vero 细胞 | ATCC | CRL-1587 |
参考文献
- Rassi, A., Rassi, A., Rassi, S. G. Predictors of mortality in chronic Chagas disease: a systematic review of observational studies. Circulation. 115 (9), 1101-1108 (2007).
- Pérez-Molina, J. A., Molina, I. Chagas disease. The Lancet. 391 (10115), 82-94 (2018).
- World Health Organization & TDR Disease Reference Group on Chagas Disease, human African Trypanosomiasis and Leishmaniasis. Research priorities for Chagas disease, human African trypanosomiasis and leishmaniasis. World Health Organization. , Available from: https//apps.who.int/iris/handle/10665/77472 (2012).
- Messenger, L. A., Miles, M. A., Bern, C. Between a bug and a hard place: Trypanosoma cruzi genetic diversity and the clinical outcomes of Chagas disease. Expert Review of Anti-infective Therapy. 13 (8), 995-1029 (2015).
- Steverding, D. The history of Chagas disease. Parasites & Vectors. 7, 317(2014).
- Viotti, R., et al. Towards a paradigm shift in the treatment of chronic Chagas disease. Antimicrobial Agents and Chemotherapy. 58 (2), 635-639 (2014).
- Bern, C. Chagas’ Disease. The New England Journal of Medicine. 373 (19), 1882(2015).
- Drugs for Neglected Diseases Initiative. , Available from: https//dndi.org/diseases/chagas/ (2020).
- Bustamante, J. M., Tarleton, R. L. Methodological advances in drug discovery for Chagas disease. Expert Opinion on Drug Discovery. 6 (6), 653-661 (2011).
- Buckner, F. S., Verlinde, C. L., La Flamme, A. C., Van Voorhis, W. C. Efficient technique for screening drugs for activity against Trypanosoma cruzi using parasites expressing beta-galactosidase. Antimicrobial Agents and Chemotherapy. 40 (11), 2592-2597 (1996).
- Vega, C., Rolón, M., Martínez-Fernández, A. R., Escario, J. A., Gómez-Barrio, A. A new pharmacological screening assay with Trypanosoma cruzi epimastigotes expressing beta-galactosidase. Parasitology Research. 95 (4), 296-298 (2005).
- Bettiol, E., et al. Identification of three classes of heteroaromatic compounds with activity against intracellular Trypanosoma cruzi by chemical library screening. PLoS Neglected Tropical Diseases. 3 (2), 384(2009).
- Gulin, J. E. N., et al. Optimization and biological validation of an in vitro assay using the transfected Dm28c/pLacZ Trypanosoma cruzi strain. Biology Methods and Protocols. 6 (1), 004(2021).
- da Silva Santos, A. C., Moura, D. M. N., Dos Santos, T. A. R., de Melo Neto, O. P., Pereira, V. R. A. Assessment of Leishmania cell lines expressing high levels of beta-galactosidase as alternative tools for the evaluation of anti-leishmanial drug activity. Journal of Microbiological Methods. 166, 105732(2019).
- McFadden, D. C., Seeber, F., Boothroyd, J. C. Use of Toxoplasma gondii expressing beta-galactosidase for colorimetric assessment of drug activity in vitro. Antimicrobial Agents and Chemotherapy. 41 (9), 1849-1853 (1997).
- Moreno-Viguri, E., et al. In vitro and in vivo anti-Trypanosoma cruzi activity of new arylamine Mannich base-type derivatives. Journal of Medicinal Chemistry. 59 (24), 10929-10945 (2016).
- García, P., Alonso, V. L., Serra, E., Escalante, A. M., Furlan, R. L. E. Discovery of a biologically active bromodomain inhibitor by target-directed dynamic combinatorial chemistry. ACS Medicinal Chemistry Letters. 9 (10), 1002-1006 (2018).
- Vela, A., et al. In vitro susceptibility of Trypanosoma cruzi discrete typing units (DTUs) to benznidazole: A systematic review and meta-analysis. PLoS Neglected Tropical Diseases. 15 (3), 0009269(2021).
- Alonso-Padilla, J., Rodríguez, A. High throughput screening for anti-Trypanosoma cruzi drug discovery. PLoS Neglected Tropical Diseases. 8 (12), 3259(2014).
- Martinez-Peinado, N., et al. Amaryllidaceae alkaloids with anti-Trypanosoma cruzi activity. Parasites & Vectors. 13 (1), 299(2020).
- Puente, V., Demaria, A., Frank, F. M., Batlle, A., Lombardo, M. E. Anti-parasitic effect of vitamin C alone and in combination with benznidazole against Trypanosoma cruzi. PLoS Neglected Tropical Diseases. 12 (9), 0006764(2018).
- Muelas-Serrano, S., Nogal-Ruiz, J. J., Gómez-Barrio, A. Setting of a colorimetric method to determine the viability of Trypanosoma cruzi epimastigotes. Parasitology Research. 86 (12), 999-1002 (2000).
重印与许可
