عادة ما يتم فحص مستويات جزيء إشارات الخلية الالتهابية أكسيد النيتريك (NO) باستخدام كاشف جريس. في هذا البروتوكول ، أنشأنا اختبار Griess المعدل باستخدام أنسجة دماغ ذبابة الفاكهة الحية من أجل الكشف عن إفراز NO بطريقة بسيطة وقابلة للقياس الكمي وقابلة للتكرار بدرجة كبيرة.
مقالة منهجية
الفحص الكمي الجديد للأنسجة الكاملة لمستويات أكسيد النيتريك في ذبابة الفاكهة استجابة الالتهاب العصبي
في هذه المقالة
ملخص
الملخص
< p class = "jove_content" > الالتهاب العصبي هو استجابة مناعية فطرية معقدة حيوية للوظيفة الصحية للجهاز العصبي المركزي (CNS). في ظل الظروف العادية ، تستجيب شبكة معقدة من المحرضات وأجهزة الكشف والمنشطات بسرعة لتلف الخلايا العصبية أو العدوى أو المخالفات المناعية الأخرى. يرتبط هذا الالتهاب في الخلايا المناعية ارتباطا وثيقا بأمراض الاضطرابات التنكسية العصبية ، مثل مرض باركنسون (PD) ومرض الزهايمر ومرض التصلب الجانبي الضموري. في ظل حالات المرض المعرضة للخطر ، قد يؤدي الالتهاب المزمن ، الذي يهدف إلى تقليل تلف الخلايا العصبية ، إلى الإفراط في إثارة الخلايا المناعية ، مما يؤدي في النهاية إلى تفاقم تطور المرض. على سبيل المثال ، يتم تسريع فقدان الخلايا العصبية الدوبامينية في الدماغ المتوسط ، وهي سمة مميزة لمرض باركنسون ، عن طريق التنشيط المفرط للاستجابة الالتهابية. على الرغم من أن سبب مرض باركنسون غير معروف إلى حد كبير ، إلا أن التعرض للسموم البيئية متورط في ظهور حالات متفرقة. على سبيل المثال ، ثبت أن مبيد الأعشاب باراكوات يحفز الأمراض الشبيهة بمرض باركنسون في العديد من النماذج الحيوانية ، بما في ذلك ذبابة الفاكهة السوداء. هنا ، استخدمنا الاستجابة المناعية الفطرية المحفوظة في ذبابة الفاكهة لتطوير اختبار قادر على اكتشاف مستويات متفاوتة من أكسيد النيتريك ، وهو جزيء إشارات خلوية حاسم لتنشيط سلسلة الاستجابة الالتهابية وموت الخلايا العصبية المستهدفة. باستخدام الضرر العصبي الناجم عن الباراكوات ، نقوم بتقييم تأثير هذه الإهانات المناعية على التحفيز الالتهابي العصبي من خلال استخدام اختبار كمي جديد. يتم استخراج الأدمغة الكاملة بالكامل من الذباب إما المعرض للسموم العصبية أو من الأنماط الجينية التي ترفع من القابلية للتنكس العصبي ثم تحضنها في وسط زراعة الخلايا. بعد ذلك ، باستخدام مبادئ تفاعل كاشف Griess ، يمكننا اكتشاف التغييرات الطفيفة في إفراز أكسيد النيتريك في وسط زراعة الخلايا ، مما يؤدي بشكل أساسي إلى إنشاء نموذج أساسي للأنسجة الحية في إجراء بسيط. يتم تضخيم فائدة هذا النموذج من خلال التعقيد الجيني والجزيئي القوي لذبابة الفاكهة السوداء ، ويمكن تعديل هذا الاختبار ليكون قابلا للتطبيق على أنسجة ذبابة الفاكهة الأخرى أو حتى نماذج التهاب الكائن الحي الصغير الكامل.
المقدمة
الالتهاب العصبي هو استجابة مناعية معقدة ثبت أنها مرتبطة ارتباطا وثيقا بأمراض مجموعة واسعة من الأمراض ، ومعظمها اضطرابات تنكسية عصبية. في ظل الظروف القاعدية ، تحافظ هذه الشبكة متعددة الأوجه من الخلايا المناعية المحيطة على صحة الأنسجة من خلال استجابتها السريعة للعدوى أو اللويحات أو الإصابة1،2. يمكن أن تحدث الاستجابة الالتهابية العصبية من قبل الجهاز العصبي المركزي للثدييات بسبب الإهانات الطفيفة ، مثل الإجهاد التأكسدي الخلوي المرتبط بالشيخوخة الطبيعية ، أو الاعتداءات الكبيرة ، مثل تلف الخلايا العصبية الذي يحدث من التعرض الحاد لسم كيميائي. عندما يحدث هذا الحث ، يتم تنشيط خلايا المراقبة البلعمية المعروفة باسم الخلايا الدبقية الصغيرة وتهاجر إلى موقع تلف الخلايا العصبية. تبدأ هذه الخلايا المناعية الشبيهة بالزبال ، والتي تشبه خلايا البلاعم الموجودة في المحيط ، سلسلة إشارات متطورة مع الخلايا العصبية التالفة ، وكذلك مع الخلايا النجمية ، مما يدعم الخلايا الدبقية التي تعمل جنبا إلى جنب مع الخلايا الدبقية الصغيرة للاستجابة الدبقية الصغيرة القويةعادة 3-7. بمجرد تنشيطها ، تبدأ الخلايا الدبقية الصغيرة في عملية التهاب لتحفيز جهاز المناعة وتعزيز إصلاح الأنسجة1،8.
في ظل ظروف الإهانة المستمرة ، كما هو الحال في الأمراض التنكسية العصبية مثل مرض باركنسون (PD) ومرض الزهايمر والتصلب الجانبي الضموري ، يتسبب الالتهاب المزمن في أضرار جسيمة للأنسجة السليمة أيضا. أظهرت الدراسات الحديثة أن هذه الاستجابة المستمرة والعدوانية من قبل الجهاز المناعي قد تؤدي في الواقع إلى رد فعل مفرط في الاستثارة يؤدي إلى تفاقم حالة المرض بدلا من تحسين الحالة9-11.
في ذبابة الفاكهة السوداء ، يتم الحفاظ على الاستجابة المناعية الفطرية جيدا وراثيا. على الرغم من افتقارها إلى شبكة مناعية تكيفية حقيقية ، إلا أن ذبابة الفاكهة تحافظ على نظام مناعي فطري متطور يحتوي على فئة من الخلايا البلعمية تعرف باسم الخلايا الدموية. تم تحديد هذه الخلايا المناعية سابقا على أنها خلايا شبيهة بالبلاعم تهاجر إلى موقع الإصابة12،13 ، وتخضع للبلعمة أثناء الصدمة الإنتانية14 ، أو إدخال طفيلي15 ، أو عدوى فيروسية16.
< p class = "jove_content"> الأهم من ذلك ، مثل البلاعم الثديية ، تعبر الخلايا الدموية البلعمية عن سينسيز أكسيد النيتريك (NOS) وتنتج أكسيد النيتريك (NO) ، وهو مكون إشارات حاسم لذبابة الفاكهة 15،16. ومع ذلك ، تمكنت كل هذه الدراسات فقط من إظهار استجابات الخلايا الدموية أثناء التطور الجنيني وفي اليرقات.لاحظ مختبرنا التهابا عصبيا قويا بوساطة الخلايا الدموية في أدمغة ذبابة الفاكهة البالغة ، وهي ظاهرة غير معروفة سابقا17. تم تحفيز هذه الاستجابة من خلال التعرض للباراكوات السامة. حددت الدراسات الوبائية التي أجرتها المعاهد الوطنية للصحة مبيدات الأعشاب المستخدمة على نطاق واسع كعامل خطر محتمل في ظهور مرض باركنسون لدىالبشر 18. كانت الأبحاث التي تبحث في علاج الباراكوات في نماذج الثدييات قد أثبتت بالفعل صحة خصائصه السامة للأعصاب وأظهرت أن مبيدات الأعشاب تؤدي إلى أعراض باركنسون ، مثل التشوهات الحركية وفقدان الخلايا العصبية الانتقائي19-21. في ذبابة الفاكهة ، يؤدي علاج الباراكوات إلى مجموعة واسعة من الأنماط الظاهرية السلوكية لمرض باركنسون بالإضافة إلى موت الخلايا العصبية الدوبامينية بما يتفق مع أمراض باركنسون22. على الرغم من أن الآليات والعوامل الوراثية المرتبطة بهذه الاستجابة الالتهابية العصبية لم يتم توضيحها بالكامل بعد في ذبابة الفاكهة ، فقد لاحظنا تحريضا محفوظا ل NOS أثناء التنكس العصبي.
باستخدام هذه الطريقة ، اكتشفنا أيضا استجابة التهابية عصبية مماثلة ، وإن كانت أقل دراماتيكية ، باستخدام أنماط وراثية متحولة ذات حساسية سامة عصبية معروفة. مشفر بواسطة الجين Punch ، GTP cyclohydrolase هو البروتين الأول والمحدد للمعدل في التخليق الحيوي ل BH4 ، والذي يعمل بعد ذلك كعامل مساعد ضروري ل NOS23،24. تتسبب طفرة فقدان الوظيفة PuZ22 في انخفاض الاستجابة الالتهابية وزيادة القابلية للإصابة بالباراكوات25. باستخدام هذا البروتوكول ، تمكنا من تحديد التعديلات الدقيقة نسبيا لمستويات أكسيد النيتريك الناجمة عن هذا التباين الجيني.
لاكتشاف NO في عيناتنا ، نستخدم كاشف Griess ، وهي طريقة لونية مقبولة على نطاق واسع لقياس مستويات NO. يقيس هذا الكاشف بشكل غير مباشر وفرة NO النسبية عن طريق الكشف عن وجود النتريت ، وهو أحد المنتجين النهائيين لإنتاج أكسيد النيتريك. تم تطبيق بروتوكولات الكشف عن النتريت الحالية باستخدام كاشف Griess بشكل أساسي للتحليلات المختبرية أو في زراعة الخلايا ، حيث ينتشر NO في وسط الاستزراع. قمنا في البداية بتطوير طريقة قائمة على كاشف Griess للكشف عن NOS في ذبابة الفاكهة الخام متجانسات الرأس25. ومع ذلك ، وجدنا أن هذه الطريقة متغيرة إلى حد ما مع الظروف المتغيرة ، ويفترض أن يكون ذلك بسبب عدم الاستقرار والتفاعل العالي والتركيز النسبي المنخفض ل NO في أنسجة الرأس بأكملها. لذلك ، سعينا إلى تطوير طريقة تعتمد على بروتوكولات زراعة الخلايا التي من شأنها أن تسمح بمزيد من الحساسية والموثوقية في تحديد نشاط NOS. نصف هنا طريقة مشابهة من الناحية المفاهيمية لتلك المستخدمة سابقا للكشف عن NOS في ذبابة الفاكهة يرقات Malpighian tubules26. في هذا الإجراء ، نستخدم أدمغة كاملة تم تشريحها مباشرة بعد العلاج بالسموم للحث على الاستجابة الالتهابية. بعد ذلك ، قمنا باحتضان هذه العينات في وسط زراعة الحشرات للحفاظ على سلامة الأنسجة ، وتعزيز حساسية وموثوقية الفحص القائم على كاشف جريس.
نتوقع أنه باستخدام الأدوات الجينية المتطورة المتاحة ، يتمتع هذا النموذج بالقدرة على العمل كأداة واعدة للتحقيق في شبكة الالتهاب / التنكس العصبي الديناميكي. مع القدرة على تحديد التنشيط والشدة النسبية للاستجابة الالتهابية العصبية بدقة ، يخلق هذا الاختبار الجديد ثقافة أنسجة أولية قادرة على اكتشاف علامات الالتهاب العصبي المفرزة. تقدم هذه الطريقة نماذج الكائنات الحية الصغيرة للالتهاب ، وهي تقنية غير مكلفة وحساسة للغاية للفحص السريع لعينات الكائن الحي الكامل أو الأنسجة الحية حيث كانت غير موجودة سابقا.
البروتوكول
فئة
1. التعرض للباراكوات
- الحفاظ على مزارع ذبابة الفاكهة القياسية في وسط استزراع ذبابة الفاكهة القياسي عند 25 درجة مئوية تحت كثافات مكافئة تتكون من حوالي 35 أنثى و 15 ذكرا.
- لتحضير غرف التغذية ، ضع كمية صغيرة من القطن الماص في قاع قارورة فارغة مع ورق ترشيح فوق القطن مباشرة.
- تخدير الذباب الذكور البالغين بعد 3-5 أيام من الإكلاء باستخدام الغيبوبة الباردة أو ثاني أكسيد الكربون2. بالنسبة للتجارب الموضحة هنا ، استخدم ذكور النمط الجيني y ث1118.
- لفصل الغيبوبة الباردة ، اضغط على قوارير التغذية التي تحتوي على الذباب ثم قم بإزالة السدادة بسرعة وانقل الذباب مباشرة إلى قارورة نظيفة وفارغة ، مع التأكد من وضع الملصقات بشكل صحيح.
- بمجرد نقل الذباب بنجاح إلى قوارير الطعام الفارغة ، اضغط على القوارير ثم ضعها على الفور في دلو الثلج لمدة 5 دقائق أو حتى يتم إخراج الذباب.
ملاحظه: لا تغمر القارورة بالكامل في الثلج. يمكن أن يتسبب ذلك في دخول الماء أو الرطوبة إلى القارورة وإغراق الذباب. كإجراء احترازي آخر ، استخدم الثلج الطازج بدلا من الثلج المذاب في دلاء الثلج.
ملاحظه: انتبه جيدا لعدد الذباب المطلوب لكل اختبار ، وإذا أمكن ، أضف ذبابا إضافيا إلى كل مجموعة كإجراء احترازي في حالة حدوث خطأ بشري ، على سبيل المثال هروب الذباب أثناء التغذية أو النقل. يتطلب اختبار الكشف عن أكسيد النيتريك ، على سبيل المثال ، 20 دماغا ذبابة لكل مجموعة عينة ، لذا ضع في اعتبارك مستوى مهارة التشريح وكفاءته عند التغذية (على سبيل المثال ، يجب على المبتدئين إعداد أكثر من 20 ذبابة في حالة أخطاء النقل أو التشريح).
- بمجرد تخدير الذباب ، انقل كل مجموعة إلى قارورة التغذية المقابلة كما هو موضح أعلاه.
- بعد أن يستيقظ الذباب تماما في قوارير التغذية ، قم بتجويعها لمدة 1.5 ساعة وفي الوقت نفسه ، قم بإعداد الحلول الموضحة أدناه:
- قم بإعداد محلول مخزون من 5٪ سكروز (محلول تحكم) عن طريق إضافة 5 جم من السكروز إلى 100 مل من الماء المقطر المزدوج. يقلب حتى يذوب تماما ويخزن على حرارة 4 درجات مئوية
ملاحظه: استخدم محلول مخزون السكروز بنسبة 5٪ كمذيب لجميع محاليل التغذية اللاحقة. - تحضير محلول مخزون الباراكوات 10 ملي مولار باستخدام 5٪ سكروز كمخفف وتخزينه عند 4 درجات مئوية. تحضير جميع التركيزات الأخرى باستخدام التخفيفات التسلسلية حسب الحاجة.
تحذير: الباراكوات شديد السمية. ارجع إلى MSDS للحصول على إرشادات السلامة والمناولة / التخلص المناسب. - قم بإعداد 10 ملي مولار من هيدروكلوريد ميثيل إستر N-Nitro-L-arginine (L-NAME) ، N-nitro-D-arginine methyl ester hydrochloride (D-NAME) باستخدام 5٪ سكروز كمخفف وتخزينه عند 4 درجات مئوية. بالنسبة للتكعيب المشترك ل L-NAME أو D-NAME مع الباراكوات ، قم بإدارة كل مركب بنسبة 1: 1 بتركيز الباراكوات. تحضير جميع التركيزات الأخرى باستخدام التخفيفات التسلسلية حسب الحاجة.
ملاحظه: قم بتصفية جميع المحاليل مباشرة بعد التحضير. يجب استخدام مخزونات Paraquat و D-NAME و L-NAME في غضون أسبوع واحد من التحضير لضمان الاتساق التجريبي. - الماصة 150 ميكرولتر يوميا (أو أقل حسب مدة التغذية) من محلول التغذية على ورق الترشيح ، مع الحرص على عدم إغراق الذباب أو السماح لأي هروب.
- قم بإعداد محلول مخزون من 5٪ سكروز (محلول تحكم) عن طريق إضافة 5 جم من السكروز إلى 100 مل من الماء المقطر المزدوج. يقلب حتى يذوب تماما ويخزن على حرارة 4 درجات مئوية
- قم بإعداد غرف التغذية كما هو موضح سابقا.
ملاحظه: استخدم 3 طبقات على الأقل من ورق الترشيح لكل قارورة لمنع الجفاف. - ضع 10 ذباب ذكور بعد 3-5 أيام من الإغلاق في كل قارورة وأطعمها كما هو موضح أعلاه ، مع الحرص على عدم ترك ورق الترشيح يجف طوال الليل><. ملاحظه: حافظ على القوارير في درجة حرارة الغرفة ، بعيدا عن أشعة الشمس المباشرة لتجنب تسريع تبخر المحاليل.
- ابتداء من اليوم التالي (المعين "اليوم 1") ، سجل عدد الذباب الميت لكل قارورة مرتين في اليوم لمدة 10 أيام متتالية.
ملاحظه: تنظيم كل من التسجيل والتغذية لساعات محددة كل يوم لتقليل التباين وتوفير تناسق أعلى. - احسب متوسط البقاء على قيد الحياة باستخدام ثلاث نسخ مكررة مستقلة على الأقل لجميع المجموعات.
- قبل التشريح، قم بإدخال 50 ميكرولتر من وسط الحشرات من Grace's Insect في العدد المناسب من الآبار (بئر واحد لكل مجموعة عينة + بئر واحد لكل مجموعة عينة / عنصر تحكم "فارغ") في صفيحة ميكروتيتر سعة 96 بئرا وتسميتها بشكل مناسب. غطيها بغطاء الطبق حتى الاستخدام.
ملاحظه: بدلا من ذلك ، يمكن أيضا استخدام أنابيب الطرد المركزي المعقمة إذا كنت تفضل ذلك. - تخدير الذباب من مجموعة عينة واحدة باستخدام غيبوبة باردة كما هو موضح في الخطوات 1.3.1-1.3.2.
- بمجرد تخدير الذباب بالكامل ، ضع عدة ذباب على شريحة مجهرية
ملاحظه: ابدأ بمجموعة فرعية صغيرة من الذباب إذا لم تكن من ذوي الخبرة في التشريح. - اقطع رأس رؤوس الذباب تحت مجهر التشريح باستخدام ملقط وشفرة جراحية أو ملقطين ، وتخلص من أجسام الذباب عند الانتهاء.
- استخدم كمية صغيرة من PBS كمخزن مؤقت للتشريح ؛ يجب تجنب الجفاف.
- استخرج الدماغ الكامل باتباع طريقة Williamson & Hiesinger (2010) 27 ، وإزالة جزيئات البشرة وأي أنسجة غير دماغية (مثل أنسجة صبغة العين) بعناية (انظر الشكل 1).
- انقل الدماغ المفصل إلى البئر المسمى بشكل مناسب وكرر ذلك حتى يكون هناك ما لا يقل عن 20 دماغا لكل بئر.
- احتفظ بالأطباق على الجليد خلال فترة التشريح ولا تتجاوز أكثر من 20-30 دقيقة من الوقت الإجمالي بين بدء التشريح وبدء الفحص.
ملاحظه: يمكن استخدام أكثر من 20 دماغا طالما أن كل مجموعة لها نفس الرقم في كل بئر. قد يختلف الحد الأدنى لعدد العقول لتحقيق قراءة دقيقة (راجع قسم المناقشة لمزيد من التفاصيل). - بمجرد اكتمال مجموعة العمل ، اسمح للأدمغة بالتحتضن لمدة 6 ساعات في 25 درجة مئوية مع اهتزاز خفيف.
- اتبع الخطوات 1.2-1.6 لجميع المجموعات المتبقية.
ملاحظه: سجل وقت انتهاء الحضانة وضبطه اعتمادا على الفروق بين وقت اكتمال كل مجموعة عينة.
- قم بإعداد كاشف Griess المعدل وفقا لتوجيهات الشركة المصنعة (انظر الجدول) واحتفظ به في الظلام حتى الاستخدام. تعتمد كمية الكاشف المطلوبة على كمية العينات. على سبيل المثال ، ستتم إضافة كاشف Griess بنسبة 1: 1 إلى وسيط Grace (الخطوة 5.5). لذلك ، يجب إعداد 50 ميكرولتر لكل مجموعة عينات + 50 ميكرولتر للتحكم الفارغ.
- قم ببناء منحنى قياسي للنتريت باستخدام نتريت الصوديوم في تخفيف تسلسلي يتراوح من 0.78125-100 ملي مولار من النتريت ليصبح المجموع 8 تركيزات. < br / > ملاحظه: يجب أن يتم ذلك لكل تجربة لضمان الاتساق والدقة في تركيز العينة ونشاط كاشف جريس.
- بالإضافة إلى ذلك ، قم بإعداد ووضع ملصقات على أنابيب الطرد المركزي المعقمة سعة 0.5 مل ، وأنبوبين لكل مجموعة علاج واثنين للتحكم.
5. الكشف عن مستويات النتريت
- بمجرد انتهاء فترة الحضانة ، انقل وسط Grace (45 ميكرولتر على الأقل) من آبار الميكروتيتر إلى المجموعة الأولى من أنابيب الطرد المركزي المقابلة لكل مجموعة.
ملاحظه: كما لوحظ سابقا ، تأكد من مراعاة الاختلافات في فترات الحضانة بسبب الوقت المستغرق بين كل مجموعة من التشريح. - الخطوة الاختيارية: أضف اختزال النترات و NADPH في هذه الخطوة لتحويل النترات إلى نتريت. (لم يتم تنفيذ هذه الخطوة بناء على النتائج المعروضة)
ملاحظه: يمكن إجراء فحص النترات / النتريت إذا رغبت في ذلك مع حصة من عينة طافية كما هو موضح في مجموعات الفحص. - جهاز طرد مركزي برفق (حوالي 8،175 × جم) لمدة دقيقتين لتكسير أي جسيمات في الدماغ أو الأنسجة قد تكون قد تم استنشاقها من الآبار.
- الماصة 30 ميكرولتر من المادة الطافية من المجموعة الأولى من أنابيب الطرد المركزي إلى المجموعة الثانية من الأنابيب المقابلة ، مع التأكد من عدم تعطيل الحبيبات بعد تدوير العينات.
- أضف كاشف Griess بنسبة 1: 1 ، واحتضنه لمدة 5-10 دقائق وقم بالفحص باستخدام مقياس الطيف الضوئي NanoDrop عند امتصاص 548 نانومتر في غضون 30 دقيقة
ملاحظة: يمكن أيضا فحص العينات باستخدام قارئ صفيحة دقيقة بطول موجي امتصاص يبلغ 540 نانومتر بطول موجي مرجعي يبلغ 620 نانومتر. - كرر كل قراءة ثلاث مرات على الأقل ومتوسط القراءات.
ملاحظه: تأكد من "إفراغ" الجهاز بين كل 6-10 قراءات وقبل الانتهاء ، قم بتشغيل عنصر التحكم الفارغ (كاشف Grace's Medium plus Griess بدون أدمغة) كعينة لاستخدامها كانحراف معياري. - استخدم منحنى النتريت القياسي الذي تم إنشاؤه في الخطوة 4.2 لحساب مستويات النتريت النسبية لكل عينة.
- لحساب التركيزات غير المعروفة ، ارسم أولا قيم التركيزات المعروفة من المنحنى القياسي باستخدام الامتصاص (أي الكثافة البصرية) على المحور y والتركيز على المحور x.
- بمجرد رسم جميع قيم المنحنى القياسية ، أوجد ميل الخط المناسب الأفضل وحل معادلة x.
ملاحظه: إذا تم إجراء التخفيفات التسلسلية بشكل صحيح ، فيجب أن يكون أفضل خط مناسب خطيا أو قريبا جدا منه. إذا لم يكن الأمر كذلك ، فقم بإعادة بناء المنحنى القياسي. إذا استمرت المشاكل ، فتحقق من جميع الحلول والوسائط والكواشف للتأكد من أن المعدات تعمل بشكل صحيح وضمن نطاق اكتشافها. - بعد ذلك ، ما عليك سوى استبدال قيم الامتصاص ل y وحل x ، وهو ما يمثل التركيز.
للحصول على معلومات إضافية حول استخدام معدات NanoDrop، يرجى الرجوع إلى Desjardins et al. 2009 and Desjardins & Conklin, 201028,29.
< ص الفئة = "jove_title" >6. اللطخة الغربية- قم بإطعام 30 ذبابة لكل حالة كما هو موضح أعلاه وقطع رؤوسها ، ويفضل استخدام النيتروجين السائل والدوامة.
- قم بتجانس الرؤوس الكاملة على الجليد في 60 ميكرولتر من RIPA مع 2 ملي مولار من الديثيوثريتول (DTT) وكوكتيل مثبط البروتياز 1x المضاف قبل الاستخدام مباشرة.
- قم بتدوير العينات لمدة 5 دقائق عند 8,175 × جم في 4 درجات مئوية.
- نقل المادة الطافية إلى أنابيب الطرد المركزي الجديدة.
- امزج العينات برفق وقم بتقطيع 17 ميكرولتر من المادة الطافية في أنابيب الطرد المركزي التي تحتوي على 6.5 ميكرولتر 4x LDS عازلة للعينة و 2.5 ميكرولتر 500 ملي مولار DTT.
ملاحظه: قم بفلاش العينة المتبقية المجمدة في النيتروجين السائل وتخزينها في -20 درجة مئوية حتى الاستخدام. - تخلط العينات جيدا وتسخن على حرارة 70 درجة مئوية لمدة 10 دقائق ، مع الخلط مرة واحدة في منتصف الحضانة.
- أثناء التسخين ، قم بتجميع جهاز تشغيل الرحلان الكهربائي لجل بولي أكريلاميد (PAGE) باستخدام جل صغير NuPage Bis-Tris مسبقة الصب 4-12٪ ، وتشغيل MOPS SDS مع 500 ميكرولتر من مضادات الأكسدة في الغرفة الداخلية.
- عينات سريعة الدوران واتركها لتبرد.
- قم بتحميل 25 ميكرولتر في كل حارة.
- قم بتشغيل الرحلان الكهربائي للهلام عند 200 فولت على الثلج أو في 4 درجات مئوية لمدة 45 دقيقة أو حتى يكتمل الجل.
- بمجرد اكتمال الرحلان الكهربائي ، انقل البروتينات المنفصلة من الجل إلى أغشية النيتروسليلوز باستخدام iBlot Transfer Stacks واكتشف الإشارة باستخدام Western Blot Detection Kit.
ملاحظه: الأجسام المضادة المستخدمة هي كما يلي: الأجسام المضادة الأولية الفأر α-nNOS (1: 250) ، الماوس α بناء الجملة (1: 200) ؛ الأجسام المضادة الثانوية (1: 250) متوفرة في مجموعة الكشف عن اللطخة الغربية (الفأر). - كشف الإشارة الكيميائية باستخدام نظام التصوير الغربي أو فيلم الأشعة السينية.
ملاحظة: يمكن استخدام أي طرق قياسية للكشف عن اللطخة المناعية وقياسها لتحليل اللطخة.
النتائج
لقد ثبت في العديد من النماذج الحيوانية، مثل الفئران19، والجرذان20 وذباب الفاكهة22، أن مادة Paraquat تسبب تنكساً عصبياً يتوافق مع الاعتلالات المرضية الشبيهة بمرض باركنسون. وقد أبلغنا سابقاً أن المضاد الحيوي المناهض للالتهابات minocycline، عند إعطائه بالتزامن مع paraquat، يؤدي إلى إطالة مدة البقاء على قيد الحياة، وتقليل إنتاج أنواع الأكسجين التفاعلية، وحماية العصبونات الدوبامينية من الموت25. وبناءً على ذلك، ونظراً لأن minocycline يعمل على تثبيط الالتهاب، فقد بدأنا في استقصاء NOS، وهو بروتين رئيسي في تنشيط الاستجابة الالتهابية، ودوره في تعديل سمية paraquat.
تم إجراء منحنى سمية للباراكوات لتحديد الجرعة القاتلة الفعالة ونطاق المعالجة السامة، باستخدام تركيزات من الباراكوات تتراوح بين 1.25 و 10 mM (الشكل 2A). كما اختبرنا تأثيرات تركيزات الباراكوات عند 20 mM و 40 mM، ولكن وجدنا أن السمية كانت حادة للغاية عند هذه التركيزات المرتفعة بحيث لا يمكن تقييم الاستجابات الخلوية لهذا المسبب للإجهاد التأكسدي بدقة، ولذلك، لم ندرج نتائج هذه التركيزات في هذا التقرير. باستخدام L-NAME، وهو مثبط تنافسي لإنزيم NOS، و D-NAME، وهو المصاوغ غير النشط لـ NAME، قمنا بمعالجة ذباب ذكور بالغ بمزيج من الباراكوات وأحد مصاوغات NAME. أدت المعالجة المشتركة للذباب بالباراكوات و L-NAME إلى إنقاذ ملحوظ من تقصير فترة الحياة الناتج عن تناول الباراكوات، بينما لم تظهر الذباب المعالجة بالباراكوات و D-NAME أي تحسن في البقاء على قيد الحياة (الشكل 2B)، مما يدعم الفرضية القائلة بأن تثبيط الالتهاب من خلال تثبيط إنزيم NOS يعزز بقاء الذباب المعالج بالباراكوات.
كتحقق إضافي من استجابة الباراكوات التي يتوسطها إنزيم NOS، رصدنا تغيرات في مستويات بروتين NOS مباشرة بعد التعرض للباراكوات. وقد ارتفعت مستويات بروتين NOS بطريقة تعتمد على تركيز الباراكوات (الشكل 3A). وعند معالجة الذباب بـ 10 mM من الباراكوات على مدى فترات تعرض تتراوح بين 6-30 ساعة، لاحظنا زيادة أولية، تلاها انخفاض مع زيادة وقت التعرض (الشكل 3B)، وهو ما يتوافق مع أنماط مستويات النتريت التي لوحظت في نسختنا من مقايسة Griess (الشكل 5B). وتتسق هذه النتائج مع تقاريرنا التي تشير إلى أن المعالجة بالباراكوات تسبب تحفيز إنزيم NOS، وأن تثبيط NOS أو المعالجة بـ L-NAME أو المينوسيكلين يوفر حماية جزئية17,25.
الشكل 4A يوضح وجود علاقة خطية بين الزيادة في تركيز الباراكوات (paraquat) وحجم الاستجابة الالتهابية، والتي تم تحديدها من خلال إفراز وكشف NO. في المستويات الأساسية، أفرزت طفرات Punch متباينة الزيجوت مستويات أقل قليلاً من NO، وهو تباين غير ملموس لدرجة لا يمكن تحديدها باستخدام طرق الكشف السابقة. وعند تغذيتها على الباراكوات، لوحظت زيادة ملحوظة في مستويات NO في طفرة Punch، ومع ذلك، كانت أقل بكثير من الذباب البري المعالج (الشكل 4B). يمكن قياس القيم النسبية للذباب البري وذباب Punch بدقة وبشكل قابل للتكرار، على الرغم من أن التباين في المستويات غير المعالجة كان دقيقاً للغاية.
عند العمل مع السموم أو المواد الكيميائية، من الضروري إنشاء منحنى زمن التعرض ومنحنى سمية قائم على التركيز، حيث يمكن لهذه الظروف أن تغير حساسية المقايسة بشكل كبير. على سبيل المثال، تؤدي المعالجة بـ 5 mM من الباراكوات (paraquat) إلى أقصى قدر من اكتشاف NO بعد 24 hr من التعرض (الشكل 5A)، بينما أدى التعرض لـ 10 mM من الباراكوات إلى تحفيز أسرع (أقصى مستويات عند 12 hr)، ولكن أيضًا تدهور أسرع في النشاط أثناء فترات التعرض الممتدة (الشكل 5B). وعلى الرغم من أن التركيز الأعلى مع التحفيز السريع قد يبدو مفضلاً، إلا أن الاستجابة القصوى تعجل بموت كل من العصبونات وربما الخلايا الدموية (hemocytes) إلى الحد الذي قد تصبح معه إمكانية إعادة تكرار النتائج صعبة.
تتميز جزيئات NO بأنها غير مستقرة وعالية التفاعلية. لذا، يجب أن يتضمن المقايس الناجح ظروف حضانة توفر توازناً مثالياً بين الحث المستمر لـ NOS والتحول السريع لـ NO. ومن أجل تحديد ظروف الحضانة المثالية، قمنا بتقييم تأثير الفترة الزمنية التي حُضنت فيها الأدمغة المشرحة في وسط الزرع قبل إضافة كاشف Griess. ووجدنا أن الحضانة لمدة 6 hr في درجة حرارة الغرفة أدت إلى تحقيق أقصى مستويات للنتريت في تفاعل Griess اللاحق (الشكل 5C). ونتوقع أن تكون هناك حاجة إلى تغييرات في فترة الحضانة لتحسين الكشف في نماذج الالتهاب المختلفة. وسيكون التحديد الدقيق لجميع المعايير المثالية للكائن الحي، والنمط الجيني، والنسيج الذي يتم مقايسته أمراً أساسياً لتحقيق نتائج موثوقة ودقيقة نظراً لأن هذه العملية ديناميكية للغاية. وبوجه خاص، يُتوقع أن تتطلب المتغيرات الجينية ونماذج التعبير عن الجينات المنقولة تحسيناً جوهرياً، لا سيما فيما يتعلق بمرحلة النمو أو عمر البالغين.
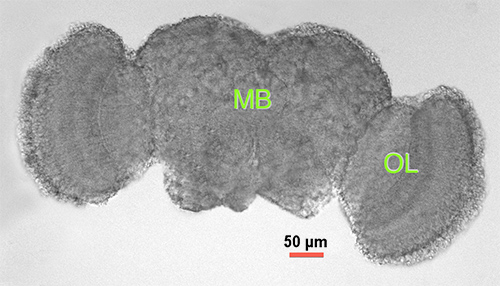
الشكل 1. دماغ ذبابة Drosophila بالغة. فحص مجهري ضوئي لدماغ ذكر بالغ تم تشريحه بعد 2-3 أيام من الخروج من الخادرة. MB = الدماغ المتوسط (القشرة المركزية)، OL = الفص البصري.
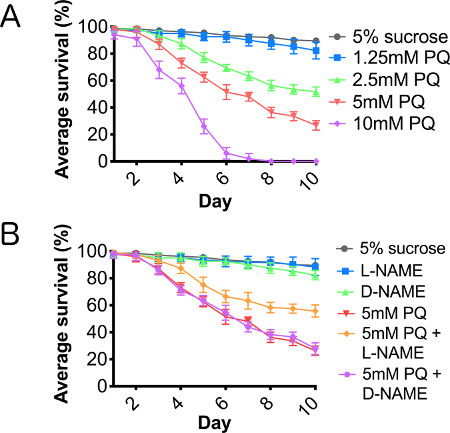
الشكل 2. يؤدي الباراكوات إلى انخفاض في طول العمر يعتمد على الجرعة، وذلك بوساطة سينثاز أكسيد النتريك. ذباب ذكور من النوع البري تم تغذيته على (A) سكروز بنسبة 5% (مجموعة ضابطة)، وتخفيفات متسلسلة من الباراكوات تتراوح تركيزاتها بين 1.25-10 mM في سكروز بنسبة 5%، و(B) تغذية مشتركة على الباراكوات مع L-NAME أو D-NAME لمدة 10 أيام متتالية. N = 3 مجموعات من 10. أشرطة الخطأ = SEM.
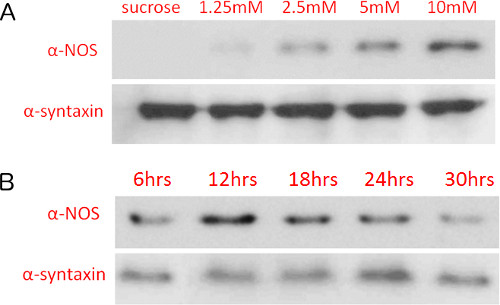
الشكل 3. تزداد مستويات بروتين سينثاز أكسيد النيتريك مع زيادة تركيز الباراكوات ومدة التعرض. الكشف عن مستويات سينثاز أكسيد النيتريك عن طريق اللطخة المناعية في ذباب عولج بتركيزات متفاوتة (A) من الباراكوات (تعرض لمدة 12 hr) و (B) بتركيز 10 mM من الباراكوات مع فترات تعرض متفاوتة. تم الكشف عن مستويات البروتين على أغشية النيتروسليلوز باستخدام التألق الكيميائي والتعريض لفيلم الأشعة السينية.
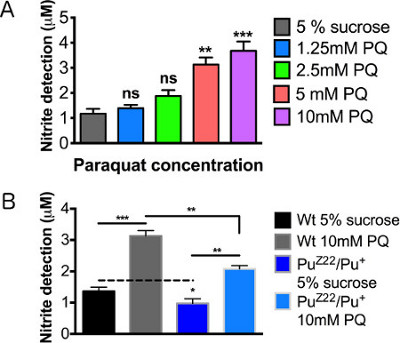
الشكل 4. مستويات الكشف عن أكسيد النتريك بعد التعرض للباراكوات. تم فحص ذباب من النوع البري (WT) الذكور بعد 2-3 أيام من الخروج من الشرنقة عقب تغذيتهم لمدة 12 hr. (A) منحنى تركيز تركيزات الباراكوات. (B) ذكور طفرات Punch متغايرة الزيجوت تم تغذيتها بمجموعة ضابطة من السكروز و10mM من الباراكوات. N = 20 brains/group. تمثل النتائج 3 مكررات لكل مجموعة. أشرطة الخطأ = SEM. أُجريت التحليلات الإحصائية باستخدام اختبار ANOVA أحادي الاتجاه مع اختبار Dunnett للمقارنات المتعددة (*, p < 0.05, **, p < 0.01, ***, p < 0.001).

الشكل 5. تحسين الكشف عن إنتاج أكسيد النيتريك عن طريق تغيير مدة التعرض للباراكوات ووقت حضانة الأنسجة. مستويات أكسيد النيتريك النسبية في أدمغة الذكور بعد 2-3 أيام من الخروج من الشرنقة عقب المعالجة لمدة 12 hr بـ (A) 5 mM من الباراكوات و (B) 10 mM من الباراكوات. (C) منحنى NO باستخدام فترات حضانة أنسجة متفاوتة عقب التغذية بـ 10 mM من الباراكوات لمدة 12 hr. تم حساب قيم الدلالة بالنسبة لما يلي: (A, B) ضوابط السكروز 5% لكل وقت تعرض (غير موضحة في المخطط)، (C) ضوابط السكروز 5% لكل وقت حضانة (غير موضحة في المخطط). N = 20 دماغ/مجموعة. تمثل النتائج 3 مكررات لكل مجموعة. أشرطة الخطأ = SEM. أُجريت التحليلات الإحصائية باستخدام ANOVA أحادية الاتجاه مع اختبار Dunnett's للمقارنات المتعددة كاختبار لاحق (*, p<0.05, **, p<0.01, ***, p<0.001).
المناقشة
هذه الطريقة ، على الرغم من بساطتها في النهج ، توفر طريقة فعالة من حيث التكلفة وقابلة للتكرار للغاية وحساسة للغاية لقياس مستويات الالتهاب العصبي بوساطة NOS. كما هو موضح في قسم النتائج ، هناك العديد من المتغيرات التي يمكن تعديلها لتحسين أو تحسين الاستجابة في نماذج أو كائنات حية مختلفة. نظرا لأن هذا نظام شديد الحساسية ، فقد تؤدي هذه المتغيرات أيضا إلى نتائج متغيرة للغاية إذا لم يتم التعامل مع جميع جوانب البروتوكول بعناية. عند الاختبار لأول مرة باستخدام أي نموذج ، نوصي بإعداد المعلمات عن طريق اختبار المتغيرات ، والتي تشمل التركيز الكيميائي (الشكل 4 أ) ، وطول التعرض (الشكلان 5 أ و 5 ب) ، ومدة الحضانة (الشكل 5 ج). ضع في اعتبارك المتغيرات الأخرى ، مثل عدد عينات الأدمغة / الأنسجة اللازمة لتحقيق عتبة الكشف والاتساق ، حتى عند تطبيق هذه الطريقة على نماذج ذبابة الفاكهة المماثلة. بالإضافة إلى ذلك ، في النماذج الجينية للالتهاب المعتمدة على العمر ، ستكون هناك حاجة إلى تحسين النقطة الزمنية الممتدة.
كما ذكرنا أعلاه ، نظرا للطبيعة الحساسة للمقايسة ، يمكن أن تؤدي التناقضات في البروتوكول إلى نتائج غير موثوقة. مع وضع ذلك في الاعتبار ، تم تعقيم جميع المعدات والمواد قبل الاستخدام. نظرا لقصر وقت الحضانة ، لم تتم إضافة أي مضادات حيوية إلى وسائط الاستزراع في هذه التجارب. ومع ذلك ، إذا تم تكييف البروتوكول لأوقات حضانة أطول أو إذا لوحظ نمو بكتيريا في الثقافات أو الوسائط ، فيجب إضافة المضادات الحيوية النموذجية مثل البنسلين - الستربتومايسين وإعادة تعقيم المعدات. كما هو الحال في أي تجارب معالجة كيميائية ، يجب توخي الحذر لضمان تربية جميع المجموعات في ظروف خاضعة للرقابة الجيدة ، ومطابقة الجنس والعمر ، وحصول جميع المجموعات على نفس ظروف التغذية تماما. تشمل بعض الأمثلة على ظروف التغذية التي يجب مراعاتها الاختلافات في التركيزات ، والتوافر والوصول إلى مصدر التغذية ، ومدة التغذية والوقت من اليوم الذي تدار فيه التغذية. ستساعد السجلات التفصيلية لجميع الظروف التجريبية والاهتمام الدقيق بأنماط التغذية الطبيعية للنموذج الخاص بك على تقليل التباين. إذا تم استخدام سلالات متحولة أو معدلة وراثيا تؤثر على الدوائر العصبية أو الأنماط السلوكية ، فإن التحكم المهم سيشمل مراقبة سلوك التغذية.
مرة أخرى ، بينما تتوفر بروتوكولات مماثلة في زراعة الخلايا والمحللات ، فإن إحدى المزايا الرئيسية لهذه الطريقة هي الحفاظ على سلامة الأنسجة ، مما يسمح لجميع العلاقات الخلوية داخل الدماغ تقريبا بالبقاء سليمة. يمثل هذا النظام حالة طبيعية نسبيا ، في الجسم الحي من الإشارات الالتهابية العصبية والإفراز الخلوي. تم إنشاء هذه التقنية في ذبابة الفاكهة ، ويمكن تصميمها بسهولة للكائنات الحية النموذجية الصغيرة الأخرى ، ولا تقتصر على الجهاز العصبي المركزي ، كما يتضح من تطبيق مماثل لإشارات NO في نموذج نبيبات Malpighian لوظائف الكلى26. الميزة الأكثر أهمية لهذا البروتوكول هي القدرة على معالجة هذا الاختبار وتكييفه ليناسب احتياجات واهتمامات الباحث أو نظام النموذج.
من خلال استخدام الأساليب الكيميائية الجينية المركبة ، فإن هذا الاختبار لديه القدرة على تعزيز قدرة أنظمة النماذج الصغيرة بشكل كبير على التحقيق في الآليات والمكونات الجينية والمعدلات الكيميائية للالتهاب.
الإفصاحات
يعلن المؤلفون عدم وجود مصالح مالية متنافسة.
شكر وتقدير
نشكر الدكتور جاي والدكتور كيم كالدويل على استخدام مقياس الطيف الضوئي NanoDrop أثناء تطوير هذا الاختبار و J. Gavin Daigle على تعليقاته واقتراحاته النقدية. تم تمويل تطوير هذه الطريقة من خلال منحة من المعاهد الوطنية للصحة (NS-078728) إلى JMO.
المواد
paraquat exposure < / em >< / strong > المجهر < td colspan = "4" > الكشف عن مستويات النتريت < / em >< / strong>اختزال < td colspan = "4" >Western Blot Analysis< / em>< / strong>
ماص < td colspan = "4" >
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Feeding Chambers< / em>< / strong> | |||
| Empty ذبابة الفاكهة < / em> قارورة | Genesee Scientific | # 32-116 | |
| قطن | يمكن استخدام أي منتج قياسي. | ||
| ورق الترشيح | فيشر | # 09-802-1B | |
| سكروز سيجما ألدريتش | #S0389 | ||
| باراكوات (هيدرات ثنائي كلوريد الميثيل فيولوجين) | سيجما ألدريتش | # 856177 | سامة. التعامل بحذر وضمن إرشادات MSDS |
| L-NAME (N< / em>-Nitro-L-arginine ميثيل إستر هيدروكلوريد) | Sigma-Aldrich | #N5751 | |
| D-NAME (N< / em>-Nitro-D-arginine ميثيل إستر هيدروكلوريد) | Sigma-Aldrich | #N4770 | |
| تشريح أدمغة الذبابة البالغة وحضانة< / em>< / strong> | |||
| Graceيمكن أيضا استبدال Grace's Medium | Invitrogen | # 11605-094 | Grace's Medium ب Sf-900 II SFM أو Sf-900 III SFM Medium للحصول على تناسق أعلى من لوت إلى لوت. |
| 96 بئر لوحة | كورنينج | # 3596 | يمكن استخدام أي منتج قياسي. |
| يمكن استخدام شريحة | أي منتج قياسي. | ||
| شفرة جراحية | ريشة | # 0197 | يمكن استخدام أي منتج قياسي. |
| ملاقط طبية 5 | Dumont | EMS # 72877-D | يمكن استخدام أي منتج قياسي. |
| 10x PBS buffer | OmniPur | # 6508 | |
| كاشف Griess المعدل | سيجما ألدريتش | # 4410 | |
| نتريت الصوديوم | سيجما | ألدريتش #S2252 أو # 237213 | |
| مجموعة فحص البروتين | Bio-Rad | 500-0001 | |
| كوفيت | يمكن استخدام أي منتج قياسي. | ||
| النترات | الاختياري | ||
| NADPH | اختياري | ||
| RIPA تحلل عازلة | Amresco | 97063-270 | |
| dithiothreitol (DTT) - عامل اختزال | Novex | B0009 | |
| كوكتيل مثبط البروتياز | Amresco | 97063-082 | |
| 4x LDS عينة عازلة | Novex | B0007 | |
| مسبقة الصب 4-12٪ Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS تشغيل المخزن المؤقت | Novex | B0001 | |
| مضادات الأكسدة | NuPage | NP0005 | |
| iBlot Transfer Stacks (Nitrocellulose) | Invitrogen | IB301002 | |
| Western blot طقم الكشف | Invitrogen | IB711002 | |
| Mouse &alpha ;-nNOS | BD Biosciences | 611853 | |
| Mouse &alpha & -syntaxin | DSHB | 8C3 | |
المراجع
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
إعادة الطباعة والأذونات
