مسألة كيفية المنظمين والدول لونين لونين تؤثر على الجينوم في الجسم الحي هو المفتاح لفهمنا لكيفية اتخاذ القرارات في وقت مبكر مصير الخلايا في الجنين النامية. رقاقة تسلسل-النهج الأكثر شعبية للتحقيق ميزات الكروماتين في-والمستوى العالمي المبينة هنا للأجنة القيطم.
مقالة منهجية
لقطة على نطاق الجينوم من المنظمين لونين والدول في
في هذه المقالة
ملخص
الملخص
يعد تجنيد منظمات الكروماتين وتعيين حالات الكروماتين لمواقع جينومية محددة أمرا محوريا لقرارات مصير الخلية وتكوين الأنسجة والأعضاء أثناء التطور. سيوفر تحديد مواقع ومستويات ميزات الكروماتين هذه في الجسم الحي معلومات قيمة حول التنظيم المكاني والزماني للعناصر الجينومية ، وسيدعم التطلعات لتقليد تطور الأنسجة الجنينية في المختبر. الطريقة الأكثر استخداما للتنميط على مستوى الجينوم وعالي الدقة هي ترسيب المناعة للكروماتين متبوعا بتسلسل الجيل التالي (ChIP-Seq). يوضح هذا البروتوكول كيف يمكن معالجة الأجنة الغنية بالصفار مثل تلك الموجودة في الضفدع Xenopus لتجارب ChIP-Seq ، ويوفر أسطر أوامر بسيطة لتحليل ما بعد التسلسل. نظرا للكفاءة العالية التي يستخرج بها البروتوكول النوى من الأنسجة الثابتة بالفورمالديهايد ، تسمح الطريقة بسهولة الترقية للحصول على ما يكفي من مادة ChIP للتنميط على مستوى الجينوم. تم استخدام بروتوكولنا بنجاح لرسم خريطة لمختلف البروتينات المرتبطة بالحمض النووي مثل عوامل النسخ ، ووسطاء الإشارات ، ومكونات آلية النسخ ، ومعدلات الكروماتين ، وتعديلات الهيستون بعد الترجمة ، ولكي يتم ذلك في مراحل مختلفة من التطور الجنيني. أخيرا ، يجب أن يكون هذا البروتوكول قابلا للتطبيق على نطاق واسع على الكائنات الحية النموذجية وغير النموذجية الأخرى مع توفر المزيد والمزيد من تجميعات الجينوم.
المقدمة
تم الإبلاغ عن المحاولات الأولى لتوصيف تفاعلات البروتين والحمض النووي في الجسم الحي منذ حوالي 30 عاما في محاولة لفهم النسخ الجيني بوساطة بوليميراز الحمض النووي الريبي في البكتيريا وفي ذبابة الفاكهة1،2. منذ ذلك الحين ، تم اعتماد استخدام الترسيب المناعي لإثراء ميزات الكروماتين المميزة (ChIP) على نطاق واسع لالتقاط أحداث الربط وحالات الكروماتين بكفاءة عالية3. بعد ذلك ، مع ظهور تقنيات المصفوفات الدقيقة القوية ، أدت هذه الطريقة إلى توصيف المناظر الطبيعية للكروماتين على مستوى الجينوم4. في الآونة الأخيرة ، أصبح توصيف الكروماتين أكثر شمولا وعالي الدقة ، لأنه يمكن الآن تسلسل الملايين من قوالب الحمض النووي المرسب المناعي المشترك بالتوازي وتعيينها إلى الجينوم (ChIP-Seq)5. نظرا لتوفر أعداد متزايدة من تجميعات الجينوم ، فإن ChIP-Seq هو نهج جذاب لمعرفة المزيد عن تنظيم الجينوم الذي يقوم عليه العمليات البيولوجية.
نقدم هنا بروتوكولا لإجراء ChIP-Seq على الأجنة الغنية بالصفار مثل تلك الموجودة في الضفدع Xenopus. تم الآن إصدار مسودات جينومات كلا النوعين من Xenopus المستخدمة على نطاق واسع - X. tropicalis و X. laevis - من قبل اتحاد جينوم Xenopus الدولي 6. تشترك أجنة أنواع Xenopus في العديد من الميزات المرغوبة التي تسهل وتسمح بتفسير دراسات الكروماتين على مستوى الجينوم ، بما في ذلك إنتاج أعداد كبيرة من الأجنة عالية الجودة ، والحجم الكبير للأجنة نفسها ، وتطورها الخارجي. بالإضافة إلى ذلك ، فإن الأجنة قابلة للتلاعب الكلاسيكي والجديد مثل تتبع نسب الخلايا ، والتهجين الكامل في الموقع ، والإفراط في التعبير عن الحمض النووي الريبي ، وتقنية الضربة القاضية بوساطة TALEN / CRISPR.
يعتمد البروتوكول التالي على عمل Lee et al. و Blythe et al. و Gentsch et al. 7-9. باختصار ، يتم تثبيت أجنة Xenopus بالفورمالديهايد في مرحلة النمو ذات الأهمية لربط البروتينات تساهميا (الارتباط المتقاطع) بالحمض النووي الجيني المرتبط بها. بعد الاستخراج النووي ، يتم تجزئة الكروماتين المتشابك لتركيز التسلسل اللاحق على مواقع ربط أو تعديل جينومي محددة ، ولتقليل مساهمات تسلسل الحمض النووي المرافق. بعد ذلك ، يتم ترسيب شظايا الكروماتين بجسم مضاد من الدرجة ChIP لإثراء تلك التي تحتوي على البروتين المهم. يتم تجريد الحمض النووي المرسب المناعي المشترك من البروتين وتنقيته قبل إنشاء مكتبة مفهرسة (مزدوجة النهاية) لتسلسل الجيل التالي (NGS). في النهاية ، يتم تقديم أسطر أوامر بسيطة لتحليل ما بعد التسلسل لبيانات ChIP-Seq.
البروتوكول
ملاحظة: كل عمل القيطم يتوافق تماما مع الحيوانات المملكة المتحدة (إجراءات علمية) لعام 1986، التي ينفذها المعهد الوطني MRC للبحوث الطبية.
1. الاستعدادات
- تقدير عدد الأجنة المطلوبة للتجربة رقاقة (انظر المناقشة).
- إعداد الحلول التالية التي يتم تخزينها في RT: 500 مل من 10X مارك لتعديل قارعو الأجراس (MMR) دون EDTA، ودرجة الحموضة تعديلها إلى 7.5 وتعقيمها بواسطة التعقيم (1 M كلوريد الصوديوم، و 20 ملي بوكل، 20 ملي CaCl 2، 10 ملي MgSO 4، 50 ملي HEPES الرقم الهيدروجيني 7.5) 10، 1 مل من شطف العازلة SDS (50 ملي تريس، حمض الهيدروكلوريك درجة الحموضة 8.0، 1 ملم EDTA، 1٪ SDS) و 1 مل من 5X DNA العازلة تحميل (0.2٪ أورانج G، و 30٪ الجلسرين، 60 ملي EDTA الرقم الهيدروجيني 8.0).
- إعداد الحلول التالية التي يتم تخزينها في 4 درجات مئوية: 50 مل من HEG عازلة (50 ملي HEPES KOH-7.5 درجة الحموضة، 1 ملم EDTA الرقم الهيدروجيني 8.0، و 20٪ الجلسرين)، 500 مل من مخازن استخراج E1 (50 ملي HEPES KOH-درجة الحموضة 7.5، 150 مم كلوريد الصوديوم، 1 ملم EDTA. 10٪ الجلسرين، و 0.5٪ Igepal CA-630، 0.25٪ تريتون X-100)، E2 (10 ملي تريس، حمض الهيدروكلوريك درجة الحموضة 8.0، 150 مم كلوريد الصوديوم، 1 ملم EDTA، 0.5 ملي EGTA)، وE3 (10 ملي تريس، حمض الهيدروكلوريك درجة الحموضة 8.0، 150 مم كلوريد الصوديوم، 1 ملم EDTA، 1٪ Igepal CA-630، 0.25٪ نا-Deoxycholate، 0.1٪ SDS)، 500 مل من RIPA العازلة (50 ملي HEPES KOH-7.5 درجة الحموضة، 500 ملي LiCl، 1 ملم EDTA ، 1٪ Igepal CA-630، 0.7٪ نا-deoxycholate) و 50 مل من TEN العازلة (10 ملي تريس، حمض الهيدروكلوريك درجة الحموضة 8.0، 1 ملم EDTA، 150 مم كلوريد الصوديوم).
- يسجل ومقطع 15 مل مخروطي أنبوب البوليسترين في علامة 7 مل. استخدام هذا الأنبوب لاحتواء مقتطفات النووية تمر صوتنة.
- لتحليل ما بعد التسلسل، واستخدام الكمبيوتر التشغيل متعددة النوى على غرار يونكس مع 8 غيغابايت على الأقل من ذاكرة الوصول العشوائي و 500 GB مساحة القرص الحرة. تثبيت البرامج التالية محليا والتي تستخدم أكثر في سطر الأوامر: FastQC، البورشيد CASAVA 1.8 فلتر الجودة، بووتي 11، SAMtools 12، HOMER 13، MACS2 14، IGV 15،16، Cluster3 17، جافا تريفيف، BLAST + 18، وb2g4pipe 19. تحقق تعليمات التثبيت ومتطلبات المجمعين والبرمجيات طرف ثالث.
- بناء مؤشر بووتي لمواءمة قصيرة NGS يقرأ الجينوم القيطم. ويظهر مثال هنا لX. مداري الجينوم V7.1 (نوفمبر 2011)، والتي يمكن تحميلها كملف FASTA (genome.fa) من بروتوكول نقل الملفات الخادم Xenbase (/ مقهى / الجينوم / JGI). نقل ملف FASTA إلى الدليل الفرعي مؤشر بووتي.
- استخدام سطر الأوامر التالية (هنا بعد الحرف الفوري>) لإنشاء ملفات مؤشر xenTro7:
> ربطة العنق والبناء /path/to/bowtie/index/genome.fa xenTro7
> تصدير BOWTIE_INDEXES = / مسار / إلى / ربطة العنق / مؤشر /
- استخدام سطر الأوامر التالية (هنا بعد الحرف الفوري>) لإنشاء ملفات مؤشر xenTro7:
- تحميل ملف الشرح الجين (GTF) من متصفح UCSC الجينوم أو موقع مرآة على الخادم نمر لأحدث الإصدارات الجينوم (genomes.nimr.mrc.ac.uk) عن طريق متصفح أدوات / الجدول. استخدام ملف الجينوم FASTA وملف GTF لتخصيص HOMER لالقيطم (على سبيل المثال، X. مداري الجينوم V7.1، - اسم xenTro7).
- بدلا من ذلك، استخدم الحزم HOMER بنيت قبل لبعض الإصدارات القديمة من الجينوم القيطم.
> loadGenome.pl -اسم xenTro7 -org اغية -fasta /path/to/genome.fa -gtf مسار / إلى / genes.gtf
- بدلا من ذلك، استخدم الحزم HOMER بنيت قبل لبعض الإصدارات القديمة من الجينوم القيطم.
- إنشاء مسار الجينوم (.genome الملف) للمتصفح الجينوم IGV عن طريق تحميل ملف FASTA مفهرسة (genome.fa مع ملف genome.fa.fai في نفس المجلد) وملف الشرح (genes.gtf). إنشاء فهرس الجينوم سقالة (genome.fa.fai) للجينوم القيطم على النحو التالي:
> samtools faidx /path/to/genome.fa - استخدام BLAST + لتمرير الجينات علم الوجود (GO) حيث من عدة أنواع نموذج (البشرية، والماوس، الزرد، ذبابة الفاكهة والخميرة) على الجينات القيطم على النحو التالي:
- تحميل جميع متواليات الترميز (CDS) كملف FASTA واحد (cds.fa) من متصفح UCSC الجينوم عبر أدوات/ متصفح الجدول وتحديث BLAST + مع قاعدة البيانات BLAST مهيأ مسبقا من البروتينات غير زائدة (NR):
> update_blastdb.pl NR - البحث عن البشرية (txid9606)، والماوس (txid10090)، الزرد (txid7955)، ذبابة الفاكهة (txid7227) والخميرة (txid4932) بروتينات من موقع NCBI عن طريق وظيفة البحث المتطورة (HTTP: //www.ncbi.nlm.nih. GOV / البروتين / متقدم) وإرسال GI الناتجة (معرف تسلسل) القائمة (sequence.gi.txt) إلى الكمبيوتر.
- تعيين الجينات القيطم إلى البروتينات الأكثر مماثلة من القائمة GI عن طريق تنفيذ BLASTx مع بعض نتوقع (E) قطع قيمة (هنا 10 -20). تأكد من أن الشكل الناتج هو XML (-outfmt 5 -out blastx_results.xml). الاستفادة من المواضيع لتوفير الوقت (-num_threads) التي ترتبط مع عدد من النوى الكمبيوتر المتاحة.
> blastx -db / مسار / إلى / NR -gilist /path/to/sequence.gi.txt -الاستعلام / مسار / طنس / cds.fa -evalue 1E-20
-outfmt 5 -out /path/to/blastx_results.xml -num_threads [# المواضيع] - فتح ملف b2gPipe.properties المجلد b2g4pipe مع محرر النصوص وتحديث خصائص قاعدة البيانات لDbacces.dbname = b2go_sep13 وDbacces.dbhost = publicdb.blast2go.com. b2g4pipe تشغيل من مجلد التثبيت.
> جافا Xmx1000m حزب المحافظين *: تحويلة / *: es.blast2go.prog.B2GAnnotPipe -في /path/to/blastx_results.xml
النتائج -out / xenTro7 -prop b2gPipe.properties -v -annot
ملاحظة: مقتطفات هذا البرنامج GO حيث لكل BLAST ضرب ويعين لهم المقابلة الجينات القيطم (xenTro7.annot). ويمكن الاطلاع على إعدادات قاعدة البيانات الأكثر المحدث بموجب أدوات / إعدادات عامة / إعدادات DataAccess من تطبيق Blast2GO جافا ويب ستارت (انظر 9.11.1).
- تحميل جميع متواليات الترميز (CDS) كملف FASTA واحد (cds.fa) من متصفح UCSC الجينوم عبر أدوات/ متصفح الجدول وتحديث BLAST + مع قاعدة البيانات BLAST مهيأ مسبقا من البروتينات غير زائدة (NR):
2. لونين عبر ربط
- إخصاب البويضات القيطم، دي هلام والثقافة مbryos وفقا لبروتوكولات القياسية 20.
- نقل الأجنة dejellied (بحد أقصى 2،500 X. المورق أو 10،000 X. مداري) في هذه المرحلة التنموية التي تهم 8 مل عينة قارورة زجاجية مع غطاء وغسلها لفترة وجيزة مرة واحدة مع 0.01x MMR.
- إصلاح الأجنة مع 1٪ الفورمالديهايد في 0.01x MMR (على سبيل المثال، إضافة 225 ميكرولتر من 36،5 حتي 38٪ الفورمالديهايد إلى 8 مل 0.01x MMR) لمدة 15 إلى 40 دقيقة في RT (انظر مناقشة للمرة التثبيت وعدد الأجنة المطلوبة في التجربة رقاقة).
ملاحظة: الفورمالديهايد غير قابلة للتآكل وشديدة السمية. فمن الخطرة في حالة العين وملامسة الجلد، وعسر الهضم، واستنشاق. استخدام غطاء الدخان عند إضافة الفورمالدهيد إلى القارورة. - وقف التثبيت عن طريق الغسيل لفترة وجيزة الأجنة ثلاث مرات مع MMR 0.01x الباردة. لا تدع السراج امبري اجراء اتصالات مع سطح السائل بسبب التوتر السطحي يسبب لهم للتمزق.
- قسامة الأجنة في 2 مل أنابيب microcentrifuge على الجليدبحد أقصى 250 الأجنة في أنبوب، التي تحتل حجم ما يقرب من 250 ميكرولتر (X. مداري) أو 600 ميكرولتر (X. المورق) قبل الفقس.
- ماصة بعيدا قدر MMR 0.01x وقت ممكن. تخطي الخطوة التالية إذا كنت لا تزال فورا مع الفرع 3.
- تتوازن الأجنة في 250 ميكرولتر من العازلة HEG البارد. مرة واحدة وقد استقر الأجنة إلى أسفل الأنبوب إزالة أكبر قدر من السائل ممكن والمفاجئة للتجمد في النيتروجين السائل. تخزين في -80 ° C.
3. لونين استخراج
ملاحظة: استخراج التالية من لونين عبر ربط من أجنة القيطم يعمل بأكبر قدر من الكفاءة مع الزمن تثبيت أشار في الخطوة 2.3 و 50 و 80 X. مداري أو 25 و 40 X. المورق الأجنة لكل مل من العازلة استخراج E1، E2 وE3. ويتكرر كل خطوة الاستخراج، بحيث مطلوب مرتين حجم المحسوبة العازلة. لرفع مستوى استخدام متعددة 2 مل microcentriأنابيب fuge أو 50 مل أنابيب الطرد المركزي. الاحتفاظ بعينات ومخازن على الجليد أثناء استخراج لونين.
- تكملة كميات كافية من مخازن E1، E2 وE3 مع 1 ملم DTT وأقراص مثبط البروتياز. إذا كان أداء رقاقة مع الأجسام المضادة الفوسفات محددة، المزيد من مخازن الملحق مع 5 ملم ناف و 2 ملي نا 3 VO (4).
- التجانس الأجنة ثابتة مع E1 قبل pipetting صعودا وهبوطا. الخليط أجهزة الطرد المركزي في جهاز للطرد المركزي (4 ° C) المبردة في 1،000 x ج لمدة 2 دقيقة (أو 5 دقائق في حالة استخدام 50 مل أنابيب). نضح طاف وأي الدهون التي تعلق على الحائط.
- و resuspend الكريات في E1. الاحتفاظ بعينات على الجليد لمدة 10 دقيقة. الطرد المركزي وتجاهل supernatants كما في الخطوة 3.2.
- و resuspend الكريات في E2. الطرد المركزي وتجاهل supernatants كما في الخطوة 3.2.
- كرر الخطوة 3.4، ولكن الحفاظ على عينات على الجليد لمدة 10 دقيقة قبل الطرد المركزي.
- و resuspend الكريات في E3. الاحتفاظ بعينات على الجليد لمدة 10 دقيقة على الأقل. الطرد المركزي وتجاهل سوpernatants كما في الخطوة 3.2.
ملاحظة: في هذه المرحلة، يجب أن تصبح resuspensions شفافة إلى حد ما. والمنظفات في E3 استخراج النوى عبر ربط من خلال تقديم معظم ما تبقى من الصفائح الدموية صفار القابلة للذوبان. - الكريات في resuspend وبركة من نوى عبر ربط (الملونة عادة البني من حبيبات الصباغ insolubilized) في إجمالي حجم 1 مل من E3. تمييع عينة مع E3 إلى 2 أو 3 مل إذا يبدو لزج جدا ويصعب ماصة. الحفاظ على الجليد أو على 4 درجات مئوية على المضي قدما في الخطوة 4 على نفس أو اليوم التالي. المفاجئة للتجمد في النيتروجين السائل وتخزينها في -80 ° C لاستخدامها لاحقا.
4. الكروماتين تجزئة
ملاحظة: يتم استخدام صوتنة على حد سواء لذوبان والقص لونين عبر ربط. وفيما يلي المعلمات لتشغيل Misonix Sonicator 3000 مجهزة microtip مدبب 1/16 بوصة وضميمة سليمة. في حالة استخدام sonicators الآخرين، اتبع توصيات الصانعين للقصعبر ربط لونين أو استخدام من 6 إلى 12 W لمدة 4 إلى 8 دقائق في المجموع.
- نقل العينة النووية من الخطوة 3.7 في أنبوب مبنية خصيصا لصوتنة (الخطوة 1.4). الحفاظ على عينة المبردة خلال صوتنة من خلال وجود أنبوب تعلق على كوب من البلاستيك 800 مل مملوءة بالماء الجليد عبر المشبك الحرارة القصير.
- ضع الكأس على مقبس المختبر. ضبط جاك بحيث يتم المغمورة في microtip sonicator في العينة إلى حوالي ثلثي عمق حجم وتركزت دون لمس جدار الأنبوب.
- يصوتن العينة لمدة 7 دقائق في المجموع، وتوقف كل 30 ثانية مع 1 دقيقة توقف. وضع السلطة إلى 1.0. بدء صوتنة وزيادة على الفور وضع السلطة (عادة من 2 إلى 4) للوصول إلى قراءة من 9 إلى 12 W. وقفة فورا إذا تبدأ العينة إلى زبد. إعادة الأنبوب وإعادة التشغيل عند زبد قد اختفى تماما.
- نقل لونين المنفصمة إلى ما قبل المبردة 1.5 مل أنابيب microcentrifuge وتدور بأقصى سرعة (> 15،000 x ج) لمدة 5 دقائق عند 4 درجات مئوية.
- نقل طاف إلى ما قبل المبردة 1.5 مل أنابيب microcentrifuge. جمع 50 ميكرولتر من طاف (التي تحتوي على مثالي لونين من حوالي 400،000 أو أكثر من نوى) لتصور درجة تجزئة لونين (القسم 5). استخدام ما تبقى من طاف للرقاقة (القسم 6).
- عينات في مخزن 4 ° C لمدة يوم وتصل إلى واحد. عينات الإضافية تجميد كما مأخوذة (واحد لكل تجربة رقاقة) في النيتروجين السائل لتخزين على المدى الطويل في -80 ° C.
5. التصوير الكروماتين تجزئة
- إضافة 50 ميكرولتر من شطف العازلة SDS، 4 ميكرولتر من 5 M كلوريد الصوديوم و 1 ميكرولتر من بروتين K (20 ميكروغرام / ميكرولتر) إلى 50 ميكرولتر من طاف من الخطوة 4.6.
- احتضان لمدة من 6 إلى 15 ساعة (O / N) في التهجين وضع الفرن إلى 65 درجة مئوية.
- تنقية الحمض النووي باستخدام PCR عدة التجارية تنقية. إذا لزم الأمر، استخدام 3 M من خلات الصوديوم (الرقم الهيدروجيني 5.2) لضبط درجة الحموضة على النحو الموصى به من قبل الشركة المصنعة. أزلDNA مرتين مع 11 ميكرولتر من شطف العازلة (10 ملي تريس، حمض الهيدروكلوريك درجة الحموضة 8.5).
- إضافة 0.4 ميكرولتر من ريبونوكلياز A (20 ميكروغرام / ميكرولتر) و 5 ميكرولتر من 5X DNA العازلة تحميل قبل تشغيل العينة كلها جنبا إلى جنب مع 100 نقطة أساس وسلم DNA 1 كيلو بايت على 1.4٪ هلام الاغاروز من قبل الكهربائي. لأفضل النتائج، وهلام وصمة عار مع آمنة النووي الحل تلطيخ حامض بعد الكهربائي.
6. مناعي لونين
ملاحظة: في هذا القسم، استخدم المنخفض الاحتفاظ 1.5 مل أنابيب microcentrifuge و1 مل على الأقل من العازلة المشار إليه في أنبوب لغسل حبات مغناطيسية لمدة 5 دقائق في 4 درجات مئوية. قبل إزالة العازلة من الخرز، وترك الأنابيب في الرف المغناطيسي لمدة 20 إلى 30 ثانية في كل مرة أو حتى الحل هو واضح.
- نقل 10 إلى 30 ميكرولتر من طاف (لونين المنفصمة) من الخطوة 4.6 إلى أنبوب جديد لاستخدامه في وقت لاحق كما عينة المدخلات، والتي تتطابق مع ما يقرب من 1٪ من إجمالي الكروماتين تستخدم لالشذرة. تخزينها في 4° C حتى عينات رقاقة جاهزة لعكس اتجاه عبر وصلات.
- نقل لونين المتبقية لأنبوب جديد. للتجارب الشذرة-QPCR تتطلب عنصر تحكم الأجسام المضادة، وتوزيع كميات متساوية من لونين لاثنين من الأنابيب.
- إضافة الجسم المضاد الشذرة الصف (أو السيطرة الضد المقابلة) إلى لونين. كدليل الخام، استخدم حوالي 1 ميكروغرام من الأجسام المضادة لكل مليون الخلايا معربا عن حاتمة في المصالح.
- لتقدير أكثر دقة كمية من الأجسام المضادة المطلوبة لكل تجربة الشذرة، تشغيل الشريحة نفسها مع كميات مختلفة من الأجسام المضادة (على سبيل المثال، 0.25 ميكروغرام، 1 ميكروغرام و 2.5 ميكروغرام) ومقارنة العائد على السلبية والإيجابية تحكم مواضع من قبل الشذرة-QPCR (انظر القسم 10). كعنصر تحكم الأجسام المضادة، واستخدام المصل العادي من نفس النوع نمط إسوي والحيوان المضيف والأجسام المضادة.
- احتضان على محور دوار (10 دورة في الدقيقة) O / N عند 4 درجات مئوية.
- غسل كمية كافية من الخرز الأجسام المضادة متوافق المغناطيسية مرة واحدة مع E3 لمدة 5 دقائق لر 4 درجات مئوية. الاختيار مواصفات الشركة المصنعة للقدرة الأجسام المضادة ملزمة من الخرز (عادة 5 إلى 20 ميكرولتر من الخرز ربط 1 ميكروغرام من مفتش الأضداد).
- إضافة حبات غسلها إلى الضد قبل المحتضنة لونين. وعلاوة على ذلك احتضان على محور دوار (10 دورة في الدقيقة) لمدة 4 ساعة.
- غسل الخرز أربع مرات (رقاقة-QPCR) أو عشر مرات (رقاقة تسلسل) مع العازلة RIPA قبل المبردة، ثم مرة واحدة مع قبل المبردة TEN العازلة.
- حمل فقط من هذه الخطوة إذا إجراء تجربة رقاقة وما يليها.
- غسلها في resuspend الخرز في 50 ميكرولتر من TEN عازلة في أنبوب. تجمع كل حبات من تجربة شريحة واحدة من قبل نقلهم إلى أنبوب واحد جديد. استخدام الحامل المغناطيسي والمبردة (4 ° C) الطرد المركزي في 1،000 x ج لجمع حبات في الجزء السفلي من الأنبوب. تجاهل كسائل أكبر قدر ممكن من دون تعطيل بيليه من الخرز.
- قطاع الشذرة مواد من حبات الخرز عن طريق إعادة التعليق في 50 إلى 100 ميكرولتر من SDS شطف العازلة وvortexing لهم بشكل مستمر مع thermomixer (1،000 دورة في الدقيقة) لمدة 15 دقيقة عند 65 درجة مئوية. بعد ذلك الطرد المركزي بأقصى سرعة (> 15،000 x ج) لمدة 30 ثانية. نقل طاف (رقاقة شطافة) إلى أنبوب جديد.
- تكرار الخطوة الأخيرة والجمع بين eluates الشذرة.
7. لونين عكس عبر ربط وتنقية DNA
- إضافة ما يكفي من SDS شطف العازلة للعينة المدخلات (الخطوة 6.1) للوصول إلى حجم العينة رقاقة، وهو 100 و 200 ميكرولتر (الخطوة 6.10). تكملة كل من رقاقة وإدخال العينات مع 1/20 حجم 5 M كلوريد الصوديوم. احتضان عينات لمن 6 إلى 15 ساعة (O / N) عند 65 درجة مئوية في فرن التهجين.
- إضافة 1 حجم TE العازلة وريبونوكلياز ألف في 200 ميكروغرام / مل. احتضان لمدة 1 ساعة على 37 درجة مئوية.
- إضافة بروتين K في 200 ميكروغرام / مل. احتضان لمدة 2 إلى 4 ساعة على 55 درجة مئوية.
- تنقية الحمض النووي عن طريق الفينول: الكلوروفورم: أيزو أميلي استخراج الكحول تليها الإيثانول هطول الأمطار على النحو المبين سابقا 9. لرقاقة تسلسل، إضافة 32ميكرولتر من شطف العازلة (10 ملي تريس، حمض الهيدروكلوريك، ودرجة الحموضة 8.5) حل بيليه DNA. ترك عينات على الجليد لمدة 30 دقيقة لضمان أن DNA يذوب تماما.
ملاحظة: مجموعات التجارية تنقية PCR لديها أقل الانتعاش DNA ولكن هي أكثر ملاءمة، ويمكن استخدامها لعينات الشذرة-QPCR. - لرقاقة تسلسل، تحديد تركيز 1 ميكرولتر من رقاقة ومدخلات DNA استخدام أساليب تعتمد على التألق. اتبع تعليمات الشركة الصانعة وتأكد من أن تركيز الحمض النووي يندرج في نطاق الكشف موثوق من التألق.
8. رقاقة تسلسل مكتبة البناء والتحقق من صحة
ملاحظة: طرق الحالية لإعداد مكتبة DNA تسمح بناء المكتبات عالية التعقيد لNGS 1-2 نانوغرام. على حساب بعض التعقيد والمكتبات يمكن أن تكون مصنوعة من اقل من 50 خريج من الحمض النووي (انظر الجدول مواد معينة / المعدات). استخدام نفس الكمية من الحمض النووي لكل من رقاقة ومكتبة الإدخال. لفترة وجيزة، لماكالبريد فهرستها (إقران النهاية) مكتبات رقاقة وما يليها، ورقاقة وDNA المدخلات تحتاج إلى أن تكون-إصلاحه نهاية، و ligated إلى محولات خاصة (انظر الجدول مواد معينة / المعدات)، وPCR تضخيم مختارة الحجم.
- اتبع إرشادات الشركة المصنعة لجعل المكتبات رقاقة وما يليها. انظر المناقشة لمزيد من التوصيات.
- أزل كل مكتبة في 12 ميكرولتر من شطف العازلة وتحديد تركيز 1 ميكرولتر من كل رقاقة والمدخلات المكتبة باستخدام مقياس التألق. نتوقع تركيزات 5-25 نانوغرام / ميكرولتر. النظر في تخفيض عدد دورات PCR (أقل من 18 دورات) إذا تركيزات أعلى من 25 نانوغرام / ميكرولتر.
ملاحظة: القياس الكمي الدقيق هو المفتاح لتحقيق نتائج NGS المثلى. المكتبات مع تركيزات منخفضة تصل إلى 1 نانوغرام / ميكرولتر بعد 18 دورات PCR يمكن أن تكون متسلسلة، ولكن في كثير من الأحيان هم من أقل التعقيد. - استخدام 1 ميكرولتر من مكتبة لتحديد حجم التوزيع جزء وللتحقق من أي تلوث محول ديمر (الفرقة نحو 120 بي بي) من قبل جالقائم على الورك الكهربائي الشعري. كرر المرحلة الصلبة تنقية تجميد عكسها مع نسبة حبات إلى عينة من 1: 1 (بدلا من 1.6: 1) إذا كان يحتوي على مكتبة dimers محول.
- أداء QPCR على التحقق من صحة الإيجابية والسلبية مواضع التحكم (انظر القسم 10) للتحقق ما إذا كانت هناك ملاحظة اتجاهات مماثلة تخصيب DNA قبل وبعد إعداد مكتبة. إرسال مراقبة الجودة المكتبات المعتمدة للالتسلسل.
9. تحليل ما بعد تسلسل والتصور البيانات
ملاحظة: في الوقت الحاضر، وغالبا ما تنفذ NGS بها في المنزل أو المرافق التجارية التسلسل (انظر مناقشة لبعض المبادئ التوجيهية NGS). الإخراج القياسي ملفات مفردة أو متعددة ضغط GZIP FASTQ (* .fastq.gz) تخزين الملايين من التسلسل يقرأ. عادة، يتم فصل بالفعل المضاعفة يقرأ وفقا لمؤشر ويحتوي كل قراءة معرف تسلسل وعلى درجة مراقبة الجودة (PHRED + 33 للالبورشيد 1.8+) لكل السفلىالدعوة الإلكترونية. هذا النهج هنا هو واحد فقط من العديد من الطرق كيفية تحليل البيانات NGS. ومما يشجع القارئ للتحقق ما إذا كان أي من أسطر الأوامر التالية تتطلب التغييرات هذا المجال تتقدم بسرعة والتحديثات التي تحدث بشكل منتظم.
- سلسلة ملفات FASTQ مضغوط غزيب والتحقق من جودة البيانات التسلسل باستخدام البرنامج النصي FastQC. تنفيذ هذا ومعظم الأوامر التالية لكل من رقاقة ومدخلات تسلسل البيانات (أمثلة أظهرت لرقاقة) من محطة:
> القط /path/to/*.fastq.gz> ChIP.fastq.gz
> fastqc ChIP.fastq.gz
ملاحظة: يجب أن البيانات الخام من التسلسل الناجح لمكتبة رقاقة يليها عالية التعقيد، تمر معظم التجارب. فشل تنبع أساسا من يدير التسلسل الفقيرة والتحف الفنية التجريبية مثل منحازة التضخيم PCR أو تلوث محول. ومن المتوقع أن درجة معينة من الازدواجية (التكرار)، وزائدة عن الحاجة يقرأ يمكن أن تمثل بحسن نية تخصيب DNA 21. ومع ذلك، يمكن للمرء أن تقييد في وقت لاحق علامات قراءة - نهاية 5 'أو يقرأ - واحد لكل زوج قاعدة للقضاء على أي زائدة عن الحاجة يقرأ دون التأثير على حساسية الكشف عن القمم (الخطوة 9.4) 21. - بيانات ما قبل عملية التسلسل لإزالة التلوث محول (homerTools تقليم -3 <محول تسلسل>) السماح عدم تطابق واحد (-mis 1). استخدام 20 قواعد الأولى من (فهرسة) محول (5 'إلى 3') الأقرب إلى جزء من DNA الفائدة على ربط (كما هو موضح لمحول المدرجة في جدول المواد معينة / المعدات).
> GZIP -cd ChIP.fastq.gz | fastq_illumina_filter -vN> ChIP.fastq
> homerTools تقليم -3 GATCGGAAGAGCACACGTCT -mis 1 -min 36 ChIP.fastq
ملاحظة: إزالة تصفيتها يقرأ (-N) مطلوب فقط افتراضيا في ملفات FASTQ الناتجة عن البورشيد 1.8. تجاهل الأمر fastq_illumina_filter (أي. '| fastq_illumina_filter -vN')إذا نسخة قديمة من 1.8 إنشاء معرف التسلسل. - محاذاة قبل المصنعة يقرأ الجينوم المرجعية (xenTro7) باستخدام بووتي. فقط تبقي تعيين فريد يقرأ (-m 1) باستخدام الإعدادات الافتراضية، أي القصوى اثنين عدم التطابق في القواعد 28 الأولى وبلغ إجمالي PHRED + 33 نقاط الجودة لجميع عدم التطابق في القراءة من القصوى 70. تقرير المحاذاة في شكل SAM (-S) . زيادة عدد ميغابايت في موضوع (--chunkmbs) إذا كانت الذاكرة هي جزء استنفدت:
> ربطة -m 1 -S -p [# المواضيع] --chunkmbs [على سبيل المثال 200] xenTro7 ChIP.fastq.trimmed> ChIP.sam
ملاحظة: بووتي تتوقع PHRED + 33 نقاط جودة افتراضيا. تضمين خيار - phred64-quals إذا تم إنشاء الملف FASTQ مع PHRED + 64 درجات الجودة من خلال البورشيد أقدم من 1.8. - استخدام الأوامر HOMER اثنين لتحويل المحاذاة (SAM) ملف إلى ملف العظيم الشأن (.bw):
> makeTagDirectory الشذرة / -single -tbp 1 ChIP.sam
> makeUCSCfile الشذرة /-bigWig / مسار / إلى / genome.fa.fai -fsize 1e20 -norm 1e7 -o ChIP.bw
ملاحظة: يتطلب التحول مؤشر سقالة (genome.fa.fai) من الجينوم إشارة (الخطوة 1.8). هنا هو التعريف تقتصر على علامة واحدة لكل زوج قاعدة (-tbp 1) وتطبيع إلى 10 ملايين يقرأ (1e7 -norm). العظيم الشأن هي واحدة من الشكل المفضل لتصور حيوي لمحات لونين مع متصفح الجينوم مثل IGV (الخطوة 9.12). - تحديد توزيع علامات (رقاقة -d /) في معالم الجينومية (على سبيل المثال، +/- 10 كيلو بايت مع 25 صناديق شركة بريتيش بتروليوم، -si زي 20000 -hist 25) مثل بداية النسخ (TSS، المثال المعروض هنا) وإنهاء ( تحويل النص إلى كلام) مواقع. تشغيل annotatePeaks.pl HOMER المخطوطة مع شروح القيطم xenTro7 (الخطوة 1.7):
> annotatePeaks.pl خدمات الدعم التقني xenTro7 الحجم 20000 -hist 25 -d الشذرة /> ChIP_tagDensity.tss - البحث قمم كبيرة من تخصيب DNA بين الشذرة(-t ChIP.sam) والإدخال (Input.sam -c) في X. مداري الجينوم باستخدام MACS2 مع 1٪ روزفلت قطع (-q 0.01) وشظايا الحمض النووي (بعد صوتنة) من 200 سنة مضت (--bw = 200) لبناء نموذج. إضافة --broad العلم لسطر الأوامر هذا إذا تتوقع توزيع واسعة من ميزة لونين من الاهتمام مثل علامات هيستون أو RNA البلمرة.
> macs2 callpeak -t ChIP.sam -c Input.sam -f SAM -n الشذرة -g 1.4376e9 -q 0.01 --bw = 200
ملاحظة: حجم الفعال للX. مداري التجمع الجينوم V7.1 حوالي 1437600000 سنة مضت (1.4376e9 -g). MACS2 بإنشاء ملف BED (ChIP_peaks.bed) تجنيد قمم مع مواقعها الجينومية. - قارن عدة لمحات لونين في شكل heatmap تتجمع:
- إنشاء مصفوفة توزيع العلامة من الدلائل كثافة سمة من الفائدة (-d الشذرة / other_ChIP /) في قمم MACS2 (على سبيل المثال، +/- 1 كيلو بايت مع 25 صناديق شركة بريتيش بتروليوم، الحجم 2000 -hist 25 -ghist):
> annotatePeaks.pl ChIP_peaks.bed xenTro7 الحجم 2000 -hist 25 -ghist -d الشذرة / other_ChIP /> ChIP.matrix - استخدام واجهة المستخدم الرسومية من Cluster3 لتحميل ملف ChIP.matrix وهرميا تجميع هذه الكثافة العلامة على أساس المسافة الإقليدية الحد الأدنى لأقرب النقطه الوسطى. فتح ملف CTD ولدت في جاوة TreeView إلى تصور المجموعات.
- إنشاء مصفوفة توزيع العلامة من الدلائل كثافة سمة من الفائدة (-d الشذرة / other_ChIP /) في قمم MACS2 (على سبيل المثال، +/- 1 كيلو بايت مع 25 صناديق شركة بريتيش بتروليوم، الحجم 2000 -hist 25 -ghist):
- البحث عن الرواية والزخارف ملزمة المعروفة سابقا، والتي أثرت في مؤتمرات القمة الذروة +/- 100 سنة مضت (الحجم 200). استخدام annotatePeaks.pl لرسم خريطة الحوادث عزر ورسم كثافة عزر:
> findMotifsGenome.pl ChIP_peaks.bed xenTro7 ChIP_motifs / الحجم 200 -p [# المواضيع]
> annotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif> ChIP_peaks.motif1
> annotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif الحجم 800 -hist 25> motif1.density
ملاحظة: البرنامج النصي infe findMotifsGenome.plRS إثراء من المقارنة لاختيارها عشوائيا تسلسل خلفية الجينات في المقام الأول. يتم حفظ عزر الرواية الأكثر المخصب تحت motif1.motif في شكل مصفوفة موقف الوزن. ومما يشجع القارئ لإثبات هذه النتائج مع غيرها من وسائل دي نوفو عزر اكتشاف مثل cisFinder 22 و 23 MEME. - علق قمم عن طريق حساب المسافة إلى أقرب الجينات وتحديد عدد قراءة تطبيع في غضون 400 النوافذ سنة مضت (الحجم 400):
> annotatePeaks.pl ChIP_peaks.bed xenTro7 الحجم 400 -d الشذرة / الإدخال /> ChIP_peaks.genes - تلخيص الانتاج باستخدام الأمر AWK التالية لسرد عدد (N)، والموقع وعدد قراءة تطبيع للدول، فرادى (R) وجميع (LR) قمم في أقرب (الهدف) الجين.
> AWK "BEGIN {FS = ' ر'} 7 $> = -5000 && 7 $ <= 1000
{N [$ 8] و+ = 1؛ R [8 $] + = $ 9؛ LR [8 $] = LR [8 $] '، و# 39؛ $ 7 '(' $ 9 ')'} {END ل(ط في N)
{الطباعة ط ' ر' N [أنا] ' ر' R [أنا] ' ر' SUBSTR (LR [أنا]، 2)}} 'ChIP_peaks.genes> ChIP_peaks.summary
ملاحظة: رقم عقب $ يشير إلى رقم العمود، والتي قد تحتاج إلى تعديل لتتناسب مع ملف ChIP_peaks.genes بإنشائه في الخطوة السابقة. هذا نموذج نصي مرشحات من أصل قمم تتجاوز 5 كيلو بايت المنبع والمصب 1 كيلو بايت من TSS $ 7 و 8 دولار و 9 $ الرجوع إلى المسافة إلى TSS، معرف الجينات والفرز قراءة تطبيع في الذروة، على التوالي. - إجراء تحليل للمصطلحات GO المخصب بين الجينات المستهدفة على النحو التالي:
- بدء تشغيل واجهة المستخدم الرسومية من Blast2GO من سطر الأوامر عن طريق جافا ويب ستارت (javaws) 19.
> javaws http://blast2go.com/webstart/blast2go1000.jnlp - اتبع التعليمات التي تظهر المطورين لتحميل الشرحملف لجينات القيطم (xenTro7.annot) كما ولدت في 1.9.4 وملف ثابت من الجينات المستهدفة المحددة. تأكد من أن معرفات الجينات نفسها وتستخدم في كل الملفات.
- بدء تشغيل واجهة المستخدم الرسومية من Blast2GO من سطر الأوامر عن طريق جافا ويب ستارت (javaws) 19.
- تصور لمحات الكروماتين بإضافة العظيم الشأن (ChIP.bw، Input.bw) وملفات BED (ChIP_peaks.bed) في IGV من المسارات. البيانات تكمل مع RNA تسلسل المسارات إذا كان متوفرا لنفس المرحلة من التطور. حفظ نتائج الدورة.
- استخدام البرمجة منصات R (www.r-project.org) أو MATLAB لمزيد من التلاعب وتصور البيانات ولدت أعلاه. بدلا من ذلك، رسم قواعد البيانات صغيرة مع Excel.
10. الشذرة-QPCR لاختبار رقاقة وتأكيدا الشذرة تسلسل
- استخدام منصة على الخط Primer3 لتصميم الاشعال المحيطة حوالي 100 سنة مضت DNA عند 60 ° C (T م) على حد سواء الإيجابية مواضع (الذروة محددة) والسلبية السيطرة. تأكيد خصوصية التمهيدي باستخدام في سيليكون البحث PCR تنفذ في متصفح UCSC الجينوم.
- إنشاء منحنى 8 نقاط قياسية من التخفيفات ثلاثة أضعاف بدءا من ما يقرب من 1٪ المدخلات أو استخدام 2 - ΔΔC (T) طريقة 8،24 لتقدير حجم تخصيب DNA.
- تنفيذ الوقت الحقيقي PCR في يثلث التقنية لجميع العينات، أي رقاقة، والسيطرة، وإذا لزم الأمر، وعينات منحنى القياسية.
- مؤامرة تخصيب DNA كنسبة مئوية من الحمض النووي المدخلات أو كنسبة من الشذرة مقابل العينة الضابطة في كل مواضع الإيجابية والسلبية السيطرة.
النتائج
ومن المتوقع إذا تم تنفيذ بروتوكول جيدا النتائج مساوية لتلك المقدمة هنا والأجسام المضادة في استخدام هو من نوعية الشذرة الصف (انظر المناقشة). هذا البروتوكول يسمح استخراج النوى من الثابتة الفورمالديهايد الأجنة القيطم والقص الفعال لونين من قبل صوتنة (الشكل 1A-C). يظهر الكروماتين المنفصمة التوزيع غير متماثل من شظايا الحمض النووي التي تتراوح أساسا من 100 إلى 1،000 سنة مضت، وتبلغ ذروتها ما بين 300 و 500 سنة مضت (الشكل 1C). مطلوب الحد الأدنى من 50 خريج من الحمض النووي immunoprecipitated لجعل بنجاح تقرن نهاية مكتبة رقاقة يليها فهرستها مع تدرج DNA ذات الحجم المماثل (الشكل 2A). وينبغي أن تكون المكتبة خالية إلى حد كبير من dimers محول، والتي يمكن أن ينظر إليه على رحلاني في حوالي 120 سنة مضت.
على التسلسل-عن طريق التخليق، ومعالجتها قبل يقرأ تم تعيينها إلى الجينوم (الشكل 2B، C). في تجربة ناجحة مع X. الأجنة مداري، عادة 50 إلى 70٪ من نهاية واحدة يقرأ من 40 سنة مضت يمكن تعيين فريد إلى الجمعية جينوم V7.1 مع الحد الأقصى اثنين عدم التطابق. في حين المدخلات يقرأ محاذاة بشكل موحد تماما في جميع أنحاء الجينوم، محاذاة رقاقة يقرأ النتائج في التخصيب حبلا الخاصة التي تكتنف ميزة لونين من الفائدة. وذلك لأن التسلسل جميع أجزاء من 'نهاية 5 (الشكل 2C) 25. تمتد في محاذاة في قراءة الاتجاه إلى متوسط حجم جزء تنتج ملامح دقيقة لملامح الكروماتين واحدة مثل الأحداث عامل النسخ ملزمة. ويبدو أن هذه إشغال DNA كما تبلغ ذروتها عندما تصور في IGV أو أي متصفح الجينوم متوافق الآخرين. وتستخدم المتصلين الذروة مثل MACS لتحديد موقع هذه القمم (الشكل 3A). وقد تم تحديد هذه الطريقة عشرات الآلاف من مواقع الربط في X. مداري الجينوم لعوامل النسخ T-مربع مثل VegT 26. الشذرة-QPCR جتربةيجب الإدلاء بالبيانات تأكيد تخصيب المحليين وجدت من قبل الشذرة تسلسل (الشكل 3B).
تجارب رقاقة يليها تسمح استكشاف خصائص الجينوم على نطاق من الميزات لونين. على سبيل المثال، وحساب توزيع قراءة على عناصر الجينومية مثل النسخ بداية والمواقع إنهاء يمكنها إبراز أية تفضيلات ملزمة المكانية حول الجينات (الشكل 3C). وبالمثل، يتم استخدام heatmap التوزيعات قراءة في مواقع الذروة إلى مقارنة ميزات لونين مختلفة على نطاق الجينوم على نطاق الشكل (3D). عوامل النسخ معينة ربط تسلسل الحمض النووي على وجه التحديد. دي نوفو تحليل عزر من قمم الكامنة الحمض النووي الجيني يمكن استرداد هذا النوع من المعلومات بما في ذلك الزخارف التخصيب المشترك للالعوامل المشتركة المحتملة (الشكل 3E). الغالبية العظمى من الجينات المستهدفة تظهر الإشغال DNA في أقل بدلا من مستوى أعلى (الشكل 3F). ويبدو أن هذه الميزة خالية من نطاق أن يكون شائع جدا بين TRالعوامل anscription وتقترح أنه ليس هناك سوى جزء صغير من الجينات المستهدفة وينظم مباشرة مع أهميتها البيولوجية 27،28. تحليل حيث GO المخصب أو سمات أخرى مثل التعبير التفاضلية من الجينات المستهدفة قد يزيد تكشف نظرة ثاقبة وظيفة بيولوجية من ميزة الكروماتين في الجنين القيطم (الشكل 3G).
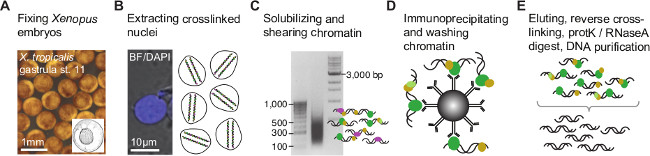
الشكل 1. الكروماتين الإجراء مناعي للأجنة القيطم. (A) هي الأجنة في هذه المرحلة التنموية التي تهم ربط تساهمي (عبر الارتباط) أي البروتينات المرتبطة الحمض النووي الجيني الثابتة الفورمالديهايد. على استخراج النووي (B)، تم تجزئة لونين عبر ربط لتضييق الحمض النووي الجيني ملزمة أو مواقع تعديل لونين عن طريق التقليل من DN المرافقةتسلسل (C). وفي وقت لاحق، وimmunoprecipitated شظايا لونين مع الأجسام المضادة الشذرة الصف لإثراء تلك التي تحتوي على حاتمة الفائدة (D). يتم تجريد DNA-immunoprecipitated شارك قبالة البروتين وتنقيته (E) قبل إنشاء مكتبة الشذرة جزء لNGS (الشكل 2). الرجاء انقر هنا لمشاهدة نسخة أكبر من هذا الرقم.
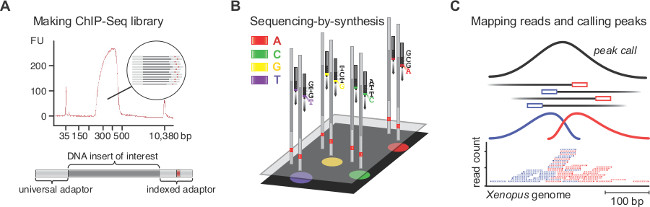
الشكل 2. رقاقة يليها إعداد مكتبة، والتسلسل عن طريق التوليف ورسم الخرائط والدعوة الذروة. (A) يعرض رحلاني مكتبة رقاقة يليها جيدة مع قوالب DNA من 250-450 نقطة أساس. هذه القوالب يترتب على إدراج DNA من الفائدة يحيط بها عالميا (58 بي بي) وفهرستها (63 بي بي) محول. (B) الملايين من مجموعات، كل مجموعة تحتوي على مع قوالب متماثلة، من قاعدة متسلسلة من قاعدة في حضور جميع النيوكليوتيدات الأربعة التي تمتلك عكسها، fluorophore متميزة وخصائص إنهاء متطابقة. تتم معالجة الصور الفلورسنت في الوقت الحقيقي لاستدعاء قواعد المناظرة، التي يتم تجميعها في نهاية المطاف إلى يقرأ. (C) يقرأ تلك الخريطة فريد لالجينوم القيطم يتم الاحتفاظ فقط. كما يتم التسلسل جميع شظايا من نهاية 5 '، ورسم خرائط لالشذرة يقرأ النتائج في قمم حبلا الخاصة التي تكتنف ميزة لونين من الفائدة. وبالتالي، المتصلين ذروة كشف عن تخصيب اليورانيوم التي تنبع من مناعي وتمديد يقرأ إلى متوسط طول القطعة في توطين بدقة ملامح لونين. الرجاء انقر هنا لمشاهدة نسخة أكبر من هذا الرقم.

الشكل 3. مثال على تحليل ما بعد تسلسل والتصور البيانات عن طريق عامل اقحي T-مربع النسخ VegT (zVegT). جميع قراءة التهم المعروضة هنا هي تطبيع إلى 10 ملايين تعيين فريد ويقرأ غير زائدة عن الحاجة. (A) مقتطفات ملف التعريف على نطاق الجينوم من zVegT ملزمة في X. الأجنة مداري المعيدة (المرحلة 11-12،5 بعد Nieuwkoop وفابر 29). كل الذروة، كومة المتابعة للبمد يقرأ، تمثل موقع واحد ملزم. وتسمى هذه القمم التي كتبها MACS2 مع معدل اكتشاف كاذبة (FDR) أقل من 1٪. يظهر كل جين mesp القريبة جدا والمنبع zVegT ملزمة، ولكن يتم التعبير عن mespa وmespb فقط من قبل تلك المرحلة (البيانات RNA يليها 30). (ب) مستويات الإشغال DNA من zVegT على النحو الذي يحدده الشذرة-QPCR في عدة مواضع (بما في ذلك غير المنطقة -bound 0.5 كيلوبايت المنبع من β -actin) confiRM إثراء محددة وجدت من قبل الشذرة تسلسل. مقارنة النتائج لmespa مع ذروة يسمى (شريط أحمر) في (A). هو تصور مستوى الإشغال DNA كنسبة مئوية من الدخل على حد سواء، ورقاقة مع الأجسام المضادة VegT (بولكلونل الأرنب من مفتش نمط إسوي) ورقاقة مع سيطرة الأجسام المضادة (مفتش أرنب عادي). أشرطة الخطأ تعكس الانحراف المعياري اثنين من مكررات البيولوجية. ويبين (C) Metagene تحليل zVegT تفضيلية ملزمة (العلامات اهمال أكثر من 25 بي بي) إلى المروج نسبة إلى أي منطقة الجينومية أخرى حول وداخل الهيئات الجينات. (D) يظهر Heatmap ك-المتوسط تتجمع مستويات (ك = 5) الإشغال DNA (العلامات اهمال أكثر من 25 بي بي) من zVegT وSmad2 / Smad3 (بيانات رقاقة يليها 31) نسبة إلى جميع المناطق متجهة الى zVegT في مرحلة المعيدة. وheatmap هو تسجيل 2 شهادة وتركزت في 5 علامات في بي بي. (E) دي نوفو تحليل عزر يكتشف الكنسي T-مربع النسخ عامل عزر ملزم في 38٪ من zVegT-المناطق ملزمة إذا كانت النتيجة عزر الأساسية هي تطبيع إلى معدل اكتشاف 5٪ في تسلسل الخلفية. وتظهر خريطة كثافة أعلى تخصيب لعزر T-مربع في وسط مواقع الربط zVegT، بينما بالكاد المخصب عزر Smad2 / Smad3 ملزمة الكنسي. (F) الرسم البياني يبين مستويات الإشغال DNA من zVegT، التي تحسب لكل الجين المستهدف من كل القمم (+/- 200 نقطة أساس) ما بين 5 كيلو بايت المنبع [-]. و1 كيلوبايت المصب [+] مواقع بداية النسخ المطابق (G) أعلى 300 الجينات مع أعلى مستويات الإشغال DNA داخل -5 كيلو بايت و +1 كيلو بايت هي المخصب لالعمليات البيولوجية من التطور الجنيني المبكر. هذه GO حيث تتماشى مع وظيفة المفترضة من zVegT. ويستند روزفلت في اختبار دقيق ثنائي الطرف فيشر وتصحيح لاختبار متعددة. الرجاء انقر هنا لمشاهدة نسخة أكبر من هذا الرقم.
المناقشة
ويحدد بروتوكول لدينا كيفية جعل وتحليل الجينوم على نطاق ملامح لونين من أجنة القيطم. وهو يغطي كل خطوة من البروتينات عبر ربط مواضع الذاتية في الجسم الحي لمعالجة الملايين من يقرأ تمثل مواقع الجينومية المخصب في سيليكون. منذ أعدادا متزايدة من مسودات الجينوم متوفرة، وينبغي أن يكون هذا البروتوكول ينطبق على الكائنات الحية وغير نموذج نموذج الأخرى. قسم تجريبي أهم، والذي يحدد هذا البروتوكول بصرف النظر عن الأعمال السابقة 8،31،33،34، هو الإجراء بعد تثبيت لاستخراج النوى عبر ربط. فإنه يسهل كفاءة solubilisation لونين والقص وسهلة الارتقاء. جنبا إلى جنب مع كفاءة محسنة لإعداد مكتبة هذا البروتوكول يسمح بناء عالية التعقيد، المكتبات رقاقة وما يليها من نصف إلى مليوني الخلايا معربا عن حاتمة المصاحب لونين من الفائدة. للتجارب الشذرة-QPCR، وعدد قليل عشرة آلاف من هذه الخلايا تكون عادة كافيةللتحقق من تخصيب DNA في ستة مواضع ربما الجينومية متميزة. هذه الأرقام هي تقديرات متحفظة، ولكن قد تختلف اعتمادا على البروتين مستوى التعبير، وجودة الأجسام المضادة، عبر ربط الكفاءة، وحاتمة للمعاقين. كدليل، والقيطم جنين واحد يحتوي على حوالي 4،000 خلايا في مرحلة منتصف الأريمة (8.5 بعد Nieuwkoop وفابر 29)، 40،000 الخلايا في مرحلة متأخرة المعيدة (12) و 100،000 الخلايا في مرحلة tailbud في وقت مبكر (20).
الوقت المحدد لتثبيت مناعي فعال يحتاج إلى أن تحدد تجريبيا عن طريق رقاقة-QPCR (المادة 10). بشكل عام، يطلب من الأوقات تثبيت أطول إذا كانت التجربة تتضمن X. المورق الأجنة، مراحل النمو المبكرة، وDNA خصائص ملزمة ضعيفة (أو غير المباشرة). ومع ذلك، فمن غير المستحسن تحديد القيطم الأجنة أطول من 40 دقيقة، أو تجهيز المزيد من الأجنة مما هو مذكور (القسم 3)، ويصبح لونين القص أقل كفاءة. ومن المهم عدملاستخدام أي الجلايسين بعد تثبيت وهذه الخطوة مشتركة لتبريد الفورمالديهايد يمكن أن تجعل استخراج النووي من أجنة صفار الغنية صعبة للغاية. حاليا، والسبب في ذلك غير معروف. فمن المتصور أن ناتج إضافة الفورمالديهايد جليكاين يتفاعل أكثر مع الأمينية مجموعات أو بقايا أرجينين 35 N-المحطة.
الجسم المضاد هو مفتاح أي تجربة الشذرة وتحتاج إلى ضوابط كافية لتنفيذها لإظهار خصوصيته لحاتمة ذات الاهتمام (انظر المبادئ التوجيهية التي كتبها Landt وآخرون 36). إذا لم يكن هناك الأجسام المضادة الشذرة الصف هو متاح، وإدخال الموسومة حاتمة البروتينات الانصهار المقابلة قد يكون بديلا مشروعا وهذه البروتينات يمكن أن تشغل endogeneous مواقع الربط 37. في هذه الحالة، الأجنة uninjected هي الأفضل لاستخدامه كقاعدة سيطرة سلبية بدلا من رقاقة مع المصل غير محددة. ويمكن أيضا أن تطبق هذه الاستراتيجية إذا يتم التعبير عن بروتين من الفائدة عند مستويات منخفضة مما أدى إلى انتعاش الفقراء من ENRIDNA جنة التعليم العالي.
كما لصنع المكتبات رقاقة وما يليها، وذلك بسبب انخفاض كمية من الحمض النووي في الاستخدام، فمن المستحسن أن تختار لإجراءات التي تقلل من عدد من الخطوات التنظيف والجمع بين ردود الفعل للحفاظ على أي فقدان DNA كحد أدنى. محولات والاشعال يجب أن تكون متوافقة مع تسلسل متعدد ومنصة NGS (انظر الجدول مواد معينة / المعدات). إذا باستخدام Y-محولات (التي كانت تحمل أسلحة واحدة الذين تقطعت بهم السبل طويلة)، فمن الأهمية بمكان ما قبل تضخيم المكتبة مع 3-5 جولات من PCR قبل إدراج DNA-اختيار حجم (على سبيل المثال، من 100 إلى 300 بي بي) من قبل الكهربائي للهلام. الغايات واحدة الذين تقطعت بهم السبل تسبب شظايا الحمض النووي للهجرة بتباين. محاكمة يدير مع كميات مختلفة من الحمض النووي المدخلات (على سبيل المثال، 0.1، 0.5، 1، 2، 5، 10 و 20 نانوغرام) ينصح لتحديد العدد الإجمالي للدورات PCR (أقل من أو يساوي 18 دورات) المطلوبة لجعل حجم مكتبة -selected 100 إلى 200 نانوغرام. تقليل عدد دورات PCR يجعل تسلسل reduيقرأ أقل احتمالا ndant. المرحلة الصلبة الخرز تجميد عكسها جيدة تنظيف الكواشف لاسترداد بكفاءة DNA من الاهتمام وموثوق إزالة أي محولات حرة وdimers من ربط وردود الفعل PCR.
من حيث عدد ونوع وطول يقرأ، حول 20-30000000 نهاية واحدة يقرأ من 36 سنة مضت يكفي بالنسبة لمعظم التجارب رقاقة يليها لتغطية الجينوم القيطم كله مع عمق كاف. الآلات NGS الأكثر انتشارا هي قادرة بشكل روتيني لتلبية هذه المعايير. ومع ذلك، قد يكون من المفيد لزيادة عدد من يقرأ إذا كان من المتوقع لتوزيعات واسعة من يقرأ، كما لوحظ مع بعض التعديلات هيستون، بدلا من قمم حادة. بالنسبة للعديد من التجارب رقاقة وما يليها، من 4 إلى 5 مكتبات المفهرسة مختلفة يمكن تجميعها والتسلسل في تدفق واحد حارات خلية باستخدام آلة NGS عالية الأداء. أحيانا المستحسن أيضا لتمديد طول القراءة وتسلسل طرفي القالب الحمض النووي (إقران النهاية) لزيادة mappability ثالدجاجة تحليل لونين داخل المناطق الجينومية المتكررة.
وقد تم تطبيق هذا البروتوكول بنجاح إلى مجموعة واسعة من الميزات لونين مثل عوامل النسخ، وسطاء الإشارات والتعديلات هيستون ما بعد متعدية. ومع ذلك، الأجنة تكتسب درجة متزايدة من عدم التجانس الخلوية لأنها تطوير وتصبح ملامح لونين من الصعب تفسير. وقد بذلت خطوات واعدة في نبات الأرابيدوبسيس وذبابة الفاكهة إلى المناظر الطبيعية لونين الأنسجة تحديدا لمحة عن طريق استخراج نوع محدد خلية نوى 38،39. ويتضمن بروتوكول لدينا خطوة استخراج النووية، التي يمكن أن تمهد الطريق لأنسجة محددة الشذرة تسلسل في الأجنة الأخرى.
الإفصاحات
يعلن المؤلفون أنه ليس لديهم مصالح مالية متنافسة.
شكر وتقدير
نشكر كريس بينر على تنفيذ X. جينوم الاستواء (xenTro2 ، xenTro2r) في HOMER ومختبر Gilchrist للمناقشات حول تحليل ما بعد التسلسل. I.P. ساعد تحليل مصطلح GO. تم دعم GEG و JCS من قبل Wellcome Trust ويتم الآن دعمهما من قبل مجلس البحوث الطبية (البرنامج رقم U117597140).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1/16 بوصة مدبب microtip | Qsonica | 4417 | هذا microtip متوافق مع Sonicator 3000 من Misonix و Q500 / 700 من Qsonica. |
| قارورة عينة زجاجية سعة 8 مل مع غطاء | من Wheaton | 224884 | مل من قوارير عينة زجاجية شفافة للعينات المائية ذات أغطية لولبية مبطنة بالمطاط الفينولي بحجم 15-425. |
| محول | على سبيل المثال ، محول عالمي IDT أو Sigma | NA | TruSeq ،
AATGATACGGCGACCACCGAG ATCTACACTCTTTCCCTACAC GACGCTCTTCCGATC * T. محول مفهرس TruSeq ، P-GATCGGAAGAGCACACGTC TGAACTCCAGTCAC &# 8208; NNNNNN&# 8208; < / > ATCTCGTATGCCGTCT TCTGCTT * G. *, مجموعة فوسفات السندات الفوسفوروثيوات في 5' انتهاء. NNNNNN ، فهرس (انظر دليل تحضير عينة TruSeq ChIP لتسلسل الحمض النووي). طلب محولات HPLC منقى. يمكن تحضير المحولات عن طريق الجمع بين كميات متساوية المولار (كل 100 &# 181; M) من المحول العالمي والمفهرس وتبريدها ببطء من 95 &# 176 ؛ C إلى درجة حرارة الغرفة. استخدم 1.5 مللي مول لكل نانوغرام من الحمض النووي المدخل. يخزن في -20 &# 176 ؛ درجة مئوية. |
| b2g4pipe (برنامج) | Blast2GO | http://www.blast2go.com/data/blast2go/b2g4pipe_v2.5.zip غير تجاري | |
| BLAST + (برنامج) | Camacho وآخرون. | http://blast.ncbi.nlm.nih.gov/Blast.cgi?PAGE_TYPE=BlastDocs& غير تجاري | ؛ DOC_TYPE = تنزيل |
| Bowtie (برنامج) | Langmead et al. | http://bowtie-bio.sourceforge.net/index.shtml غير تجاري | |
| CISFinder (برمجيات) شاروف | وآخرون. | رقاقة http://lgsun.grc.nia.nih.gov/CisFinder/ | غير تجارية |
| للرحلان الكهربائي الشعري | Agilent Technologies | 5067-1504 | قم بتحميل هذه الشريحة ب 1 & micro ؛ ل الحمض النووي لمراقبة جودة المكتبة. يخزن في درجة حرارة 4 درجات مئوية. |
| نظام الرحلان الكهربائي الشعري القائم على الرقاقة | Agilent Technologies | G2940CA | يستخدم Agilent 2100 BioAnalyzer للتحقق من جودة مكتبات ChIP-Seq. احتفظ بالكواشف عند 4 درجات مئوية. |
| مجموعة إعداد مكتبة ChIP-Seq (KAPA Hyper Prep Kit) | Kapa Biosystems | KK8504 | Kit على إصلاح نهاية KAPA ومزيج إنزيم المخلفات A ، والمخزن المؤقت للإصلاح النهائي والذيل A ، وليغاز الحمض النووي ، والمخزن المؤقت للربط ، و KAPA HiFi HotStart ReadyMix (2X) ، ومزيج التمهيدي لتضخيم مكتبة KAPA (10X) (انظر أيضا بادئات PCR). لا يتم تضمين المحولات. يخزن في درجة حرارة -20 درجة مئوية. |
| مجموعة إعداد مكتبة ChIP-Seq (بديل ، مجموعة إعداد ThruPLEX-FD) | مجموعة Rubicon Genomics | R40048 | محولات ومواد أولية خاصة بها. تقضي هذه المجموعة على خطوات التنقية الوسيطة وهي حساسة مثل مجموعة KAPA Hyper Prep. يخزن في درجة حرارة -20 درجة مئوية. |
| Cluster3 (software) | de Hoon et al. | http://bonsai.hgc.jp/~mdehoon/software/cluster | غير التجارية |
| FastQC (البرمجيات) | سيمون أندروز | تقنيات | http://www.bioinformatics.babraham.ac.uk/projects/fastqc |
| Q32866 | كيوبيت 2.0 الفلورومتر | ||
| تقنيات حياة الكواشف | Q32851 | توفر المجموعة كاشف الفحص المركز ، والمخزن المؤقت للتخفيف ، ومعايير الحمض النووي المخففة مسبقا لمقياس الفلور Qubit. تخزين معايير الحمض النووي عند 4 درجات ؛ C ، عازلة وصبغ في درجة حرارة الغرفة. | |
| الفورمالديهايد | Sigma | F8775-4X25ML | ، للبيولوجيا الجزيئية ، 36.5-38٪ في H2O ، تم تثبيته بنسبة 10-15٪ من الميثانول. يحفظ في درجة حرارة الغرفة. تنبيه: الفورمالديهايد مادة أكالة وشديدة السمية. |
| هلام (E-Gel EX agarose ، 2٪) | تقنيات الحياة | G4010 | جل مسبقة الصب مع 11 بئرا ، تنسيق قابل للفتح. اترك مسارا واحدا بين السلم والمكتبة فارغا لتجنب التلوث المتبادل. قم بتخزين المواد الهلامية في درجة حرارة الغرفة. |
| تقنيات عمر | نظام الرحلان الكهربائي للهلام | G6465 | E-Gel iBase و E-Gel Safe Imager مجموعة مجموعة التحرير والسرد لمكتبات ChIP-Seq لاختيار الحجم. |
| مجموعة استخراج الجل | Qiagen | 28706 | قم بتخزين جميع الكواشف في درجة حرارة الغرفة. استخدم 500 وميكرو. لتر من المخزن المؤقت QG لكل 100 مجم من شريحة هلام الاغاروز 2٪ لاستخراج الحمض النووي. استخدم أعمدة MinElute (من مجموعة تنقية MinElute PCR) لمسح الحمض النووي مرتين. |
| HOMER (برنامج) كريس | بينر | فرن | تهجين http://homer.salk.edu/homer/index.html |
| غير تجاري Techne | FHB1D | Hybridizer HB-1D | |
| IGV (برنامج) | روبنسون وآخرون. | فلتر الجودة http://www.broadinstitute.org/igv/home | التجاري |
| Illumina CASAVA-1.8 (برمجيات) | Assaf Gordon | http://cancan.cshl.edu/labmembers/gordon/fastq_illumina_filter غير تجاري | |
| Java TreeView (برمجيات) | http://jtreeview.sourceforge.net | غير تجاري Alok Saldanha | |
| Edu-Lab | CH0642 | يستخدم هذا المقبس لرفع العينة في حاوية الصوت للصوتنة. | |
| سلم ، 100 نقطة أساس | نيو إنجلاند BioLabs | N3231 | احتفظ بمحلول 1x في درجة حرارة الغرفة. تخزين المخزون عند -20 درجة مئوية. |
| سلم ، 1 كيلو بايت | نيو إنجلاند BioLabs | N3232 | احتفظ بمحلول 1x في درجة حرارة الغرفة. تخزين المخزون عند -20 درجة مئوية. |
| حياة أنابيب الطرد المركزي الدقيقة سعة 1.5 مل | منخفضة الاحتفاظ AM12450 | الطرد الدقيق غير اللاصقة والخالية من RNase ، 1.5 مل | |
| MACS2 (البرمجيات) | تاو ليو | غير التجارية | https://github.com/taoliu/MACS |
| تقنيات حياة | الخرز المغناطيسي | 11201D | هذه الدينابيدات عبارة عن حبات فائقة مغناطيسية مع تقارب تنقية متعددة النسيلة للأغنام المضادة للفأر IgG مرتبطة تساهميا بسطح الخرزة. يخزن في درجة حرارة 4 درجات مئوية. |
| تقنيات حياة | الخرز المغناطيسي | 11203D | هذه الدينابيدات عبارة عن حبات فائقة مغناطيسية مع تقارب تنقية للأغنام متعددة النسيلة مضادة للأرانب IgG مرتبطة تساهميا بسطح الخرزة. يخزن في درجة حرارة 4 درجات مئوية. |
| تقنيات حياة | الخرزات المغناطيسية | 10001D | هذه الدينابيدات عبارة عن حبات فائقة مغناطيسية مع بروتين مؤتلف A مرتبط تساهميا بسطح الخرزة. يخزن في درجة حرارة 4 درجات مئوية. |
| تقنيات حياة | الخرزات المغناطيسية | 10003D | هذه الدينابيدات عبارة عن حبات فائقة المغناطيسية مع بروتين مؤتلف G مرتبط تساهميا بسطح الخرزة. يخزن في درجة حرارة 4 درجات مئوية. |
| تقنيات عمر | الرف المغناطيسي | 12321D | DynaMag-2 مغناطيس |
| MEME | Bailey et al. | غير تجاري | http://meme.nbcr.net/meme/ |
| Na3VO4 | New England BioLabs | P0758 | أورثوفانادات الصوديوم (100 مليمتر) هو مثبط عام شائع الاستخدام لبروتين فوسفوتيروسيل فوسفاتيز. يخزن في درجة حرارة -20 درجة مئوية. |
| يستخدم NaF | New England BioLabs | P0759 | فلوريد الصوديوم (500 مليمتر) بشكل شائع كمثبط عام للفوسفوسريل وفوسفاتيزات الفوسفوثريونيل. يخزن في درجة حرارة -20 درجة مئوية. |
| آلة NGS | Illumina | SY-301-1301 | محلل الجينوم IIx |
| آلة NGS (عالية الأداء) مصل | Illumina | SY-401-2501 | HiSeq |
| Normal (التحكم في الأجسام المضادة) | سانتا كروز للتكنولوجيا الحيوية | sc-2028 | استخدم كعنصر تحكم في الأجسام المضادة IgG متعددة النسيلة للماعز في تجارب ChIP-qPCR. يخزن في درجة حرارة 4 درجات مئوية. |
| مصل طبيعي (التحكم في الأجسام المضادة) | سانتا كروز للتكنولوجيا الحيوية | sc-2025 | استخدم كعنصر تحكم للأجسام المضادة IgG متعددة النسيلة للفأر في تجارب ChIP-qPCR. يخزن في درجة حرارة 4 درجات مئوية. |
| مصل طبيعي (التحكم في الأجسام المضادة) | سانتا كروز للتكنولوجيا الحيوية | sc-2027 | استخدم كعنصر تحكم للأجسام المضادة IgG متعددة النسيلة للأرانب في تجارب ChIP-qPCR. يخزن في درجة حرارة 4 درجات مئوية. |
| محلول تلطيخ الحمض | iNtRON | 21141 | استخدم محلول تلطيخ الحمض النووي RedSafe عند 1: 50،000. يحفظ في درجة حرارة الغرفة. |
| البرتقال G | Sigma | O3756-25G | 1-Phenylazo-2-naphthol-6،8-ملح ثنائي الصوديوم حمض ديسولفونيك. يخزن في درجة حرارة 4 درجات مئوية. |
| بادئات PCR | على سبيل المثال ، IDT أو Sigma | Primers لإثراء شظايا الحمض النووي المربوطة بالمحول بواسطة تفاعل البوليميراز المتسلسل (PCR): AATGATACGGCGACCACCGA * G و CAAGCAGAAGACGGCATACGA* G ، رابطة الفوسفوروثيوات. الاشعال صممها إيثان فورد. اجمع بين البرايمر عند 5 & ميكرو. م لكل منهما. استخدم 5 & ميكرو. ل في 50 & ميكرو; ل تفاعل تفاعل البوليميراز المتسلسل (PCR). يخزن في درجة حرارة -20 درجة مئوية. | |
| طقم تنقية MinElute PCR | Qiagen | 28006 | لتنقية عينات اختبار ChIP-qPCR والقص. قم بتخزين أعمدة الدوران MinElute عند 4 درجات ؛ C ، جميع المخازن المؤقتة الأخرى وأنابيب التجميع في درجة حرارة الغرفة. |
| الفينول: الكلوروفورم: كحول الأيزواميل (25: 24: 1 ، الرقم الهيدروجيني 7.9) | تقنيات الحياة | AM9730 | الفينول: الكلوروفورم: IAA (25: 24: 1) يتم خلطه مسبقا وتقديمه عند درجة الحموضة 6.6. استخدم المخزن المؤقت القلوي Tris المقدم لرفع الرقم الهيدروجيني إلى 7.9. يخزن في درجة حرارة 4 درجات مئوية تنبيه: الفينول: الكلوروفورم: كحول الأيزواميل مادة أكالة وشديدة السمية وقابلة للاحتراق. |
| Primer3 (برنامج) ستيف | روزن & أمبير أقراص هيلين سكاليتسكي | غير التجارية | http://biotools.umassmed.edu/bioapps/primer3_www.cgi |
| مثبطات البروتياز | Roche | 11836170001 | cOmplete ، Mini ، خالية من EDTA. استخدم قرصا واحدا لكل 10 مل. يخزن في درجة حرارة 4 درجات مئوية. |
| أقراص مثبطات للبروتياز | روش | 11873580001 | cOmplete ، خالية من EDTA. استخدم قرصا واحدا لكل 50 مل. يخزن في درجة حرارة 4 درجات مئوية. |
| بروتيناز K | life | AM2548 | محلول بروتيناز K (20 & micro; ز /& مايكرو ؛ ل). تخزينها في درجة حرارة -20 درجة مئوية. |
| RNase A | life technologies | 12091-039 | RNase A (20 & micro; ز /& مايكرو ؛ ل). تخزينها في درجة حرارة الغرفة. |
| الدوار | ستيوارت | SB3 | الدوار SB3 |
| SAMtools (البرمجيات) | Li et al. | http://samtools.sourceforge.neta غير تجاري | |
| حبات تثبيت قابلة للانعكاس في الطور | الصلب Beckman Coulter | A63882 | تستخدم حبات Agencourt AMPure XP لتقليل تلوث ثنائي المحول في مكتبات ChIP-Seq. يخزن في درجة حرارة 4 درجات مئوية. |
| Sonicator 3000 | Misonix / Qsonica | الأحدث. Q125 أو Q500 أو Q700 كلها مناسبة لقص الكروماتين المتشابك. | |
| حاوية الصوت | Misonix / Qsonica | اختيارية: اتبع توصية الشركة المصنعة للحصول على حاوية الصوت الصحيحة. | |
| خلاط حراري | eppendorf | 22670000 | خلاط حراري لأنابيب 24 × 1.5 مل. تحكم دقيق في درجة الحرارة من 4 درجات ؛ درجة مئوية فوق درجة حرارة الغرفة إلى 99 درجة مئوية. |
المراجع
- Gilmour, D. S., Lis, J. T. Detecting protein-DNA interactions in vivo: distribution of RNA polymerase on specific bacterial genes. Proc Natl Acad Sci U S A. 81 (14), 4275-4279 (1984).
- Gilmour, D. S., Lis, J. T. In vivo interactions of RNA polymerase II with genes of Drosophila melanogaster. Mol Cell Biol. 5 (8), 2009-2018 (1985).
- Solomon, M. J., Larsen, P. L., Varshavsky, A. Mapping protein-DNA interactions in vivo with formaldehyde: evidence that histone H4 is retained on a highly transcribed gene. Cell. 53 (6), 937-947 (1988).
- Ren, B., et al. Genome-wide location and function of DNA binding proteins. Science. 290 (5500), 2306-2309 (2000).
- Johnson, D., Mortazavi, A., Myers, R., Wold, B. Genome-wide mapping of in vivo protein-DNA interactions. Science. 316 (5830), 1497-1502 (2007).
- Hellsten, U., et al. The genome of the Western clawed frog Xenopus tropicalis. Science. 328 (5978), 633-636 (2010).
- Lee, T. I., Johnstone, S. E., Young, R. A. Chromatin immunoprecipitation and microarray-based analysis of protein location. Nature Protocols. 1 (2), 729-748 (2006).
- Blythe, S. A., Reid, C. D., Kessler, D. S., Klein, P. S. Chromatin immunoprecipitation in early Xenopus laevis embryos. Dev Dyn. 238 (6), 1422-1432 (2009).
- Gentsch, G. E., Smith, J. C. Investigating physical chromatin associations across the Xenopus genome by chromatin immunoprecipitation. Cold Spring Harb Protoc. 2014 (5), (2014).
- Ubbels, G. A., Hara, K., Koster, C. H., Kirschner, M. W. Evidence for a functional role of the cytoskeleton in determination of the dorsoventral axis in Xenopus laevis eggs. J Embryol Exp Morphol. 77, 15-37 (1983).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biol. 10 (3), R25(2009).
- Li, H., et al. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Heinz, S., et al. Simple combinations of lineage-determining transcription factors prime cis-regulatory elements required for macrophage and B cell identities. Mol Cell. 38 (4), 576-589 (2010).
- Zhang, Y., et al. Model-based analysis of ChIP-Seq (MACS). Genome Biol. 9 (9), R137(2008).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Thorvaldsdottir, H., Robinson, J. T., Mesirov, J. P. Integrative Genomics Viewer (IGV): high-performance genomics data visualization and exploration. Brief Bioinform. 14 (2), 178-192 (2013).
- Imoto, S., Nolan, J., Bioinformatics Miyano, S. 20 (9), 1453-1454 (2004).
- Camacho, C., et al. BLAST+: architecture and applications. BMC Bioinformatics. 10, 421(2009).
- Conesa, A., et al. Blast2GO: a universal tool for annotation, visualization and analysis in functional genomics research. Bioinformatics. 21 (18), 3674-3676 (2005).
- Sive, H., Grainger, R., Harland, R. Early development of Xenopus laevis: A laboratory manual. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, New York. (2000).
- Chen, Y., et al. Systematic evaluation of factors influencing ChIP-seq fidelity. Nat Methods. 9 (6), 609-614 (2012).
- Sharov, A. A., Ko, M. S. H. Exhaustive search for over-represented DNA sequence motifs with CisFinder. DNA Res. 16 (5), 261-273 (2009).
- Bailey, T. L., et al. MEME SUITE: tools for motif discovery and searching. Nucl Acids Res. 37 (2), W202-W208 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Park, P. J. ChIP-seq: advantages and challenges of a maturing technology. Nat Rev Genet. 10 (10), 669-680 (2009).
- Gentsch, G. E., et al. In vivo T-box transcription factor profiling reveals joint regulation of embryonic neuromesodermal bipotency. Cell Rep. 4 (6), 1185-1196 (2013).
- Barabasi, A. L., Oltvai, Z. N. Network biology: understanding the cell's functional organization. Nat Rev Genet. 5 (2), 101-113 (2004).
- Biggin, M. D. Animal transcription networks as highly connected, quantitative continua. Dev Cell. 21 (4), 611-626 (2011).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis (Daudin): a systematical and chronological survey of the development from the fertilized egg till the end of metamorphosis. , Garland. New York & London. (1994).
- Akkers, R. C., et al. A hierarchy of H3K4me3 and H3K27me3 acquisition in spatial gene regulation in Xenopus embryos. Dev Cell. 17 (3), 425-434 (2009).
- Yoon, S. J., Wills, A. E., Chuong, E., Gupta, R., Baker, J. C. HEB and E2A function as SMAD/FOXH1 cofactors. Genes Dev. 25 (15), 1654-1661 (2011).
- Jallow, Z., Jacobi, U. G., Weeks, D. L., Dawid, I. B., Veenstra, G. J. Specialized and redundant roles of TBP and a vertebrate-specific TBP paralog in embryonic gene regulation in Xenopus. Proc Natl Acad Sci U S A. 101 (37), 13525(2004).
- Buchholz, D. R., Paul, B. D., Shi, Y. -B. Gene-specific changes in promoter occupancy by thyroid hormone receptor during frog metamorphosis. Implications for developmental gene regulation. J Biol Chem. 280 (50), 41222-41228 (2005).
- Wills, A. E., Guptaa, R., Chuonga, E., Baker, J. C. Chromatin immunoprecipitation and deep sequencing in Xenopus tropicalis and Xenopus laevis. Methods. 66 (3), 410-421 (2014).
- Metz, B., et al. Identification of formaldehyde-induced modifications in proteins: reactions with model peptides. J Biol Chem. 279 (8), 6235-6243 (2004).
- Landt, S. G., et al. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Res. 22 (9), 1813-1831 (2012).
- Mazzoni, E. O., et al. Embryonic stem cell-based mapping of developmental transcriptional programs. Nat Methods. 8 (12), 1056-1058 (2011).
- Deal, R. B., Henikoff, S. A simple method for gene expression and chromatin profiling of individual cell types within a tissue. Dev Cell. 18 (6), 1030-1040 (2010).
- Bonn, S., et al. Tissue-specific analysis of chromatin state identifies temporal signatures of enhancer activity during embryonic development. Nat Genet. 44 (2), 148-156 (2012).
إعادة الطباعة والأذونات
