يتم إنشاء و وصف بروتوكول تعدين الجينوم الموجه قياس الطيف الكتلي هنا. وهو يستند إلى معلومات تسلسل الجينوم وتحليل LC-MS/MS ويهدف إلى تسهيل تحديد الجزيئات من المستخلصات الميكروبية والنباتية المعقدة.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
استخراج الجينوم الموجه بالطيف الكتلي كأداة للكشف عن المنتجات الطبيعية الجديدة
في هذه المقالة
ملخص
الملخص
المساحة الكيميائية التي تغطيها المنتجات الطبيعية هائلة وغير معترف بها على نطاق واسع. ولذلك، فإن المنهجيات الملائمة لإجراء تقييم واسع النطاق لوظائفها من حيث طبيعتها والفوائد البشرية المحتملة (مثل تطبيقات اكتشاف العقاقير) هي المنـزل. يصف هذا البروتوكول الجمع بين تعدين الجينوم (GM) والشبكات الجزيئية (MN)، وهما نهجان معاصران يطابقان التعليقات التوضيحية المشفرة العنقودية الجينية في تسلسل الجينوم الكامل مع توقيعات البنية الكيميائية من المستخلصات الأيضية الخام. هذه هي الخطوة الأولى نحو اكتشاف كيانات طبيعية جديدة. هذه المفاهيم، عند تطبيقها معا، يتم تعريفها هنا على أنها تعدين الجينوم الموجه MS. في هذه الطريقة، يتم تعيين المكونات الرئيسية مسبقًا (باستخدام MN)، وترتبط المرشحين الجدد ذات الصلة هيكلياً بالتعليقات التوضيحية لتسلسل الجينوم (باستخدام جنرال موتورز). الجمع بين جنرال موتورز وMN هو استراتيجية مربحة لاستهداف العمود الفقري جزيء جديد أو حصاد ملامح التمثيل الغذائي من أجل تحديد نظائرها من المركبات المعروفة بالفعل.
المقدمة
غالبًا ما تتكون تحقيقات التمثيل الغذائي الثانوي من فحص المستخلصات الخام لأنشطة بيولوجية محددة يتبعها تنقية وتحديد وتوصيف المكونات التي تنتمي إلى كسور نشطة. وقد أثبتت هذه العملية كفاءتها، مما يعزز عزل العديد من الكيانات الكيميائية. ومع ذلك ، في الوقت الحاضر يعتبر هذا غير ممكن ، ويرجع ذلك أساسا إلى ارتفاع معدلات إعادة اكتشاف. وبما أن صناعة الأدوية أحدثت ثورة دون معرفة أدوار ووظائف الأيض المتخصصة، فقد تم تحديدها في ظروف مختبرية لا تمثل الطبيعة بدقة1. اليوم ، هناك فهم أفضل لتأثيرات الإشارات الطبيعية ، والإفراز ، ووجود معظم الأهداف بتركيزات منخفضة بشكل لا يمكن اكتشافه. بالإضافة إلى ذلك، سيساعد تنظيم العملية المجتمع الأكاديمي وصناعة الأدوية على الاستفادة من هذه المعرفة. كما سيفيد البحوث التي تنطوي على العزل المباشر للمستقلبات المتعلقة بمجموعات الجينات الاصطناعية البيولوجية الصامتة (BGCs)2.
وفي هذا السياق، جدد التقدم في التسلسل الجينومي الاهتمام بفرز نواتج الأيض الدقيقة. وذلك لأن تحليل المعلومات الجينومية لمجموعات التركيب الحيوي المكشوف ة يمكن أن يكشف عن الجينات ترميز المركبات الجديدة لا لوحظ أو تنتج في ظل ظروف المختبر. تتوفر العديد من مشاريع الجينوم الميكروبية الكاملة أو المسودات اليوم ، ويتزايد العدد كل عام ، مما يوفر آفاقًا هائلة للكشف عن جزيئات جديدة نشطة بيولوجيًا من خلال تعدين الجينوم3،4.
أطلس مجموعات الجينات التركيبية الحيوية هو أكبر مجموعة حالية من مجموعات الجينات الملغومة تلقائيًا كمكون من منصة الجينوم الميكروبي المتكامل لمعهد الجينوم المشترك (JGI IMG-ABC)2. وفي الآونة الأخيرة، عززت مبادرة توحيد مجموعات الجينات الاصطناعية الأحيائية الحد الأدنى من المعلومات (MIBiG) الشرح اليدوي لـ BGCs، مما يوفر مجموعة بيانات مرجعية منسقة للغاية5. في الوقت الحاضر ، تتوفر الكثير من الأدوات لتمكين التعدين الحسابي للبيانات الوراثية واتصالها بالأيض الثانوي المعروف. كما تم وضع استراتيجيات مختلفة للوصول إلى منتجات طبيعية جديدة نشطة بيولوجياً (أي التعبير غير المتجانس، وحذف الجينات المستهدفة، وإعادة التشكيل المختبري، والتسلسل الجينومي، والفحص الموجه بالنظائر [نهج جنوميسوتوبي]، والتلاعب بالمنظمين المحليين والعالميين، والتعدين القائم على الأهداف المقاومة، والتعدين المستقل للثقافة، ومؤخراً،نهجMS/code الموجهة2،6،,77،,8،9،, 10،11،12،13،14،15).
يتطلب تعدين الجينوم كاستراتيجية فريدة بذل جهود لتعليقات توضيحية لمجموعة واحدة أو صغيرة من الجزيئات. وبالتالي، لا تزال هناك ثغرات في العملية التي تعطى فيها الأولوية للمركبات الجديدة من أجل عزلها وتوضيح هيكلها. ومن حيث المبدأ، لا تستهدف هذه النهج سوى مسار واحد للتركيب الحيوي لكل تجربة، مما يؤدي إلى بطء معدل الاكتشاف. في هذا المعنى ، فإن استخدام جنرال موتورز جنبا إلى جنب مع نهج الشبكات الجزيئية يمثل تقدما هاما لبحوث المنتجات الطبيعية14،15.
إن تعدد الاستخدامات والدقة والحساسية العالية لقياس الطيف اللوني الكتلي السائل (LC-MS) يجعلها طريقة جيدة لتحديد المركب. حاليا، وقد استثمرت العديد من المنصات الخوارزميات وأجنحة البرمجيات لmetabolomics غير المستهدفة16،,17،,18،,19، 20,20. يتضمن جوهر هذه البرامج اكتشاف الميزات (ذروة الانتقاء)21 ومحاذاة الذروة ، مما يسمح بمطابقة الميزات المتطابقة عبر مجموعة من العينات والبحث عن الأنماط. الخوارزميات المستندة إلى نمط MS22،23 مقارنة أنماط التجزئة المميزة وتطابق أوجه التشابه MS2 التي تولد العائلات الجزيئية التي تشترك في الميزات الهيكلية. ويمكن بعد ذلك تسليط الضوء على هذه الميزات وتتجمع، ومنح القدرة على اكتشاف بسرعة جزيئات2معروفة وغير معروفة من استخراج البيولوجية المعقدة من قبل MS جنبا إلى جنب2،24،,25. ولذلك، فإن التصلب المتعدد المترادف هو طريقة متعددة الاستخدامات للحصول على معلومات هيكلية عن العديد من الأنماط الكيميائية الواردة في كمية كبيرة من البيانات في وقت واحد.
تستخدم خوارزمية الشبكات الجزيئية الاجتماعية للمنتجات الطبيعية العالمية (GNPS)26 كثافة الأيونات المجزأة العادية لبناء ناقلات متعددة الأبعاد ، حيث تتم مقارنة أوجه التشابه باستخدام وظيفة جيب الجيب. يتم رسم العلاقة بين الأيونات الأصلية المختلفة في تمثيل مخطط، حيث يتم تصور كل تجزئة كعقدة (دوائر)، ويتم تعريف الصلة بين كل عقدة بواسطة حافة (خطوط). يتم تعريف التصور العالمي للجزيئات من مصدر واحد كشبكة جزيئية. الجزيئات المتباينة هيكليا التي تتفتت بشكل فريد ستشكل مجموعة خاصة بهم أو كوكبة، في حين أن الجزيئات ذات الصلة تتجمع معا. يسمح الأنماط الكيميائية العنقودية باتصال افتراضي من الميزات الهيكلية المماثلة لأصولها التركيبية الحيوية.
الجمع بين كل من النمط الكيميائي إلى النمط الجيني ونهج النمط الجيني إلى النمط الكيميائي هو قوي عند إنشاء روابط المعلوماتية الحيوية بين BGCs ومنتجاتها جزيء صغير27. ولذلك، فإن تعدين الجينوم الموجه بالتصلب المتعدد هو طريقة سريعة واستراتيجية منخفضة الاستهلاك للمواد، ويساعد على سد الأيون اتّصال الوالدين والمسارات الاصطناعية الحيوية التي كشفت عنها WGS لسلالة واحدة أو أكثر في ظل ظروف استقلابية وبيئية متنوعة.
سير العمل من هذا البروتوكول(الشكل 1)يتكون من تغذية البيانات WGS في منصة الشرح الكتلة الجينية الاصطناعية مثل antiSMASH28،29،30. فهو يساعد على تقدير مجموعة متنوعة من المركبات وفئة من المركبات المشفرة من قبل الجينوم. يجب اعتماد استراتيجية لاستهداف مجموعة الجينات الاصطناعية الحيوية ترميز كيان كيميائي ذات فائدة، ومقتطفات الثقافة من سلالة نوع البرية و / أو سلالة غير متجانسة تحتوي على BGC يمكن تحليلها لتوليد الأيونات المجمعة على أساس أوجه التشابه باستخدام GNPS26،31. وبالتالي، فمن الممكن تحديد جزيئات جديدة ترتبط بـ BGC المستهدفة وغير متوفرة في قاعدة البيانات (نظائرها غير معروفة بشكل رئيسي، وتنتج في بعض الأحيان في تاتر منخفضة). ومن المهم النظر في أن المستخدمين يمكن أن تسهم في هذه المنصات وأن توافر المعلوماتية الحيوية وبيانات MS / MS يتزايد بسرعة ، مما يؤدي إلى تطوير مستمر ورفع مستوى الأدوات الحسابية الفعالة والخوارزميات لتوجيه اتصالات فعالة من مقتطفات معقدة مع الجزيئات.
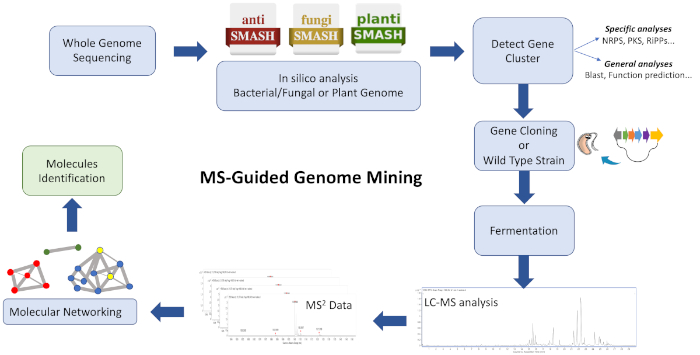
الشكل 1: نظرة عامة على سير العمل بأكمله. يُظهر هذا الشكل توضيحًا لخطوات المعلوماتية الحيوية والاستنساخ والشبكات الجزيئية التي تنطوي عليها نهج تعدين الجينوم الموجه بالتصلب المتعدد الموصوف لتحديد الأيض الجديدة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
يصف هذا البروتوكول سير العمل السريع والفعال للجمع بين تعدين الجينوم والشبكات الجزيئية كنقطة انطلاق لخط أنابيب اكتشاف المنتج الطبيعي. على الرغم من أن العديد من التطبيقات قادرة على تصور تكوين وعلاقة الجزيئات التي يمكن اكتشافها بالتصلب المتعدد في شبكة واحدة ، يتم اعتماد العديد منها هنا لتصور جزيئات مجمعة متشابهة هيكلياً. باستخدام هذه الاستراتيجية، يتم تحديد منتجات سيكلوبسيبتيد الرواية التي لوحظت في المستخلصات الأيضية من Streptomyces sp. CBMAI 2042 بنجاح. تسترشد التعدين الجينوم، يتم التعرف على كامل ترميز الكتلة الجينية الاصطناعية الحيوية لفالينوميسين واستنساخها في سلالة المنتج Streptomyces coelicolor M1146. وأخيراً، وبعد إقامة الشبكات الجزيئية القائمة على نمط MS، ترتبط الجزيئات التي تم اكتشافها بواسطة التصلب المتعدد بـ BGCs المسؤولة عن تكوينها الحيوي32.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
1- تعدين الجينوم لمجموعات الجينات الاصطناعية الأحيائية
- تنفيذ تسلسل الجينوم الكامل (WGS) كخطوة أولى لانتخاب مجموعة جينات اصطناعية بيولوجية (BCG) لتعدين الجينوم الموجه بالتصلب المتعدد. ويمكن الحصول على مشروع الجينوم كله من سلالة من الفائدة (البكتيريا) من قبل تكنولوجيا MiSeq Illumina باستخدام ما يلي مع الحمض النووي الجينومي عالية الجودة: بندقية TruSeq PCR خالية مكتبة الإعدادية وNextera ماتي زوج مكتبة إعداد كيت33.
ملاحظة: بعد التسلسل، يمكن تجميع مكتبة بندقية Illumina ومكتبة زوج Illumina mate باستخدام Newbler v3.0 (روش، 454) برنامج المجمّع (وجد في ) ومشروح باستخدام خط أنابيب يستند إلى FgeneSB (وجد في http://lt;http://www.softberry.com/berry.phtml?topic=fgenesb_annotator&group=help&group=خطوط الأنابيب>)، كما هو موضحسابقاً 33. إعلانات موارد علم الأحياء الدقيقة (MRA) هي مجلة مفتوحة تمامًا مع مقالات تنشر توفر أي مورد ميكروبيولوجي مودع في مستودع متاح (توجد في ). يتم تحديد جينات ترميز البروتين المرشحة باستخدام تعليق خادم RAST34، ويتم إيداع مشروع بندقية الجينوم الكامل (WGS) في قواعد بيانات تسلسل DDBJ/ENA/GenBank (الموجودة في http://lt;https://www.ncbi.nlm.nih.gov/genbank/>) والذهب (الموجود في قواعد بيانات التسلسل - للحصول على معلومات في silico حول مجموعات الجينات الأيضالثانوية من الشروح الجينوم تسلسل كامل، وتقديم ملف التسلسل (GenBank/EMBL أو شكل فاستا) إلى منصة antiSMASH (وجدت في ).
- حدد مجموعة الجينات ذات الاهتمام من بيانات الإخراج(الشكل 2)استنادًا إلى الكتلة المعروفة الأكثر تشابهًا.
ملاحظة: أولاً، من الروتيني استكشاف الجينات حسب الجينات وإجراء عمليات بحث فردية (blastp) لتقييم الوظائف المرتبطة بمجموعات الجينات الاصطناعية الحيوية المطلوبة. يمكن أن يساعد هذا الإجراء أيضًا في تحديد BGC الذي من المحتمل أن يرتبط بإنتاج مركب مرغوب فيه ، حتى لو كان نسبة منخفضة. يعتبر التنبؤ المضاد لـ SMASH جميع الجينات داخل المجموعة لجعل التغطية المئوية ، والتي يمكن أن تمثل نسبة منخفضة عالمية من التشابه لـ BGC الهادفة. ومع ذلك ، عند تحليل الجينات حسب الجينات ، فمن الممكن الحصول على معلومات أكثر دقة باستخدام الكتلة المعروفة الأكثر تشابها. ثانياً، لدى antiSMASH خياران لصقل البحث: 1) صرامة الكشف: درجة الصرامة التي يجب أن تعتبر مجموعة الجينات الاصطناعية الحيوية ضرب. وبالنسبة لهذا الخيار، ينبغي أن يستخدم المستخدم البارامترات التالية: (أ) صارمة: يكتشف مجموعات محددة تحديدا جيدا وتحتوي على جميع المناطق المطلوبة، وغير عرضة للأخطاء المتعلقة بالمعلومات الوراثية؛ (ب) بالكشف عن مجموعات محددة تحديدا جيدا تحتوي على جميع المناطق المطلوبة، غير عرضة للأخطاء المتعلقة بالمعلومات الوراثية؛ (ب) الكشف عن مجموعات محددة تحديدا جيدا تحتوي على جميع المناطق المطلوبة، غير عرضة للأخطاء المتعلقة بالمعلومات الوراثية؛ (ب) الكشف عن مجموعات محددة تحديدا جيدا تحتوي على جميع المناطق المطلوبة؛ (ب) الكشف عن مجموعات محددة تحديدا جيدا تحتوي على جميع المناطق المطلوبة؛ (ب ب) استرخاء: يكشف عن مجموعات جزئية في عداد المفقودين واحدة أو أكثر من المنطقة الوظيفية، والتي تعمل أيضا للكشف عن ميزة صارمة؛ أو ج) فضفاضة: يكشف عن مجموعات ومجموعات غير محددة بشكل جيد والتي من المرجح أن تتطابق مع الأيض الأولية، والتي يمكن أن تؤدي إلى ظهور إيجابيات كاذبة أو BGCs غير محددة بشكل جيد. الخيار الآخر هو 2) ميزات إضافية: نوع المعلومات التي يجب على المنصة البحث عنها وإظهارها في الإخراج. بشكل عام، يمكن أن يوفر هذان الخياران الوقت بعد التنبؤ. ومع ذلك، تتطلب مهمة antiSMASH فترة زمنية أطول.
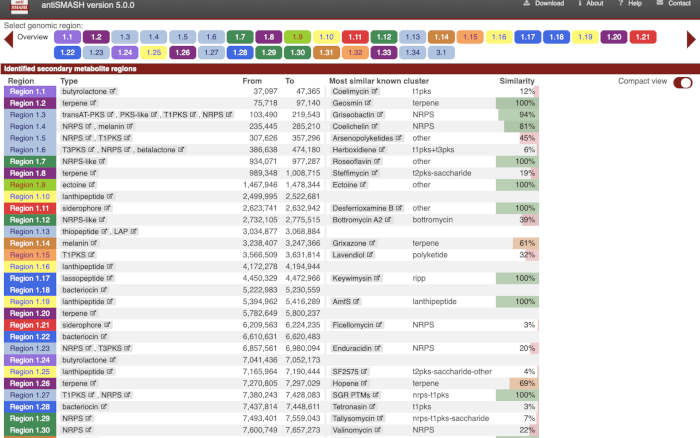
الشكل 2: الإخراج من منصة antiSMASH. التمثيل الغذائي الثانوي في تحليل silico من تعليق تسلسل الجينوم كله. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- استنادا إلى معلومات تسلسل الحمض النووي من BGC، تصميم التمهيديات (20-25 nt) يحيط الكتلة الجينية لESAC(E. القولونية/العقديات الكروموسوم الاصطناعي) فحص المكتبة.
ملاحظة: طرق مختلفة35،36 يمكن استخدامها لالتقاط كتلة الجينات الاصطناعية الحيوية بأكملها من الحمض النووي. هنا ، فإن الطريقة المستخدمة هي بناء مكتبة ESAC تمثيلية37،38 من Streptomyces sp. CBMAI 2042 تحتوي على مستنسخات مع أجزاء متوسطة الحجم من ~ 95 كيلوبايت.
2. التعبير غير المتجانس عن مجموعة الجينات الاصطناعية الحيوية الكاملة من مكتبة ESAC
- نقل متجه ESAC من E. coli DH10B إلى E. coli ET12567 بواسطة اقتران ثلاثي الوالدين32.
- Inoculate E. coli ET12567 (CamR)، TOPO10/pR9604 (CarbR)، DH10B/ESAC4H (AprR) في 5 مل من لوريا-بيرتاني (LB) المتوسطة التي تحتوي على الكلورامفينيكول (25 ميكروغرام/مل)، الكاربينيسيلين (100 ميكروغرام/مل)، وأبراميسين (50 ميكروغرام/مل).
- احتضان الثقافة بين عشية وضحاها في 37 درجة مئوية و 250 دورة في الدقيقة.
- Inoculate 500 μL من الثقافة بين عشية وضحاها في 10 مل من LB المتوسطة التي تحتوي على نصف تركيز المضادات الحيوية.
- احتضان الثقافة عند 37 درجة مئوية و 250 دورة في الدقيقة حتى تصل إلىA 600 من 0.4-0.6.
- حصاد الخلايا عن طريق الطرد المركزي في 2200 × ز لمدة 5 دقيقة.
- غسل الخلايا مرتين مع 20 مل من وسط LB.
- إعادة تعليق الخلايا في 500 ميكرولتر من LB المتوسطة.
- مزيج 20 ميكرولتر من كل سلالة في أنبوب الطرد المركزي الدقيقة والتنقيط في لوحة أغار مع LB المتوسطة تفتقر إلى المضادات الحيوية.
- احتضان لوحات في 37 درجة مئوية بين عشية وضحاها.
- الشرائط الخلايا نمت على لوحة أجار LB الطازجة التي تحتوي على المضادات الحيوية واحتضان في 37 درجة مئوية بين عشية وضحاها.
3. العقديات/E. اقتران القولون
- للحصول على الكائن الغيري المؤتلف، قم بإجراء الاقتران32 بين E. coli ET12567 الذي يحتوي على ناقل ESAC، والمساعد plasmid pR9604، وStreptomyces coelicolor M1146 أو سلالة مضيف ة مختارة أخرى39.
- اليوم 1: Inoculate المستعمرات المعزولة من S. coelicolor M1146 في 25 مل من وسط TSBY في قارورة إرلنماير 250 مل مزودة بربيع إينوك عند 30 درجة مئوية و 200 دورة في الدقيقة لمدة 48 ساعة.
- اليوم 2/3: Inoculate ET12567/ESAC/pR9604 في 5 مل من الكل المتوسط المحتوي على الكلورامفينيكول (25 ميكروغرام/مل)، الكاربنيسيلين (100 ميكروغرام/مل)، وأبرامايسين (50 ميكروغرام/مل) بين عشية وضحاها عند 37 درجة مئوية و250 دورة في الدقيقة.
- اليوم 3/4: Inoculate 500 ميكرولتر من الثقافة بين عشية وضحاها في 10 مل من 2TY (في أنبوب مخروطي 50 مل) التي تحتوي على تركيزات نصف العمل من المضادات الحيوية. احتضان في 37 درجة مئوية و 250 دورة في الدقيقة حتى تصل إلىA 600 من 0.4-0.6.
- الطرد المركزي الثقافات (ET12567/ESAC/pR9604 و M1146) في 2200 × ز لمدة 10 دقيقة.
- غسل الكريات 2x في 20 مل من 2TY المتوسطة وإعادة تعليق في 500 ميكرولتر من 2TY.
- Aliquot 200 μL من S. coelicolor M1146 تعليق وتمييع في 500 ميكرولتر من 2TY (تعليق A).
- Aliquot 200 ميكرولتر من التعليق A وتمييع في 500 ميكرولتر من 2TY (تعليق B).
- Aliquot 200 ميكرولتر من التعليق B وتمييع في 500 ميكرولتر من 2TY (تعليق C).
- Aliquot 200 ميكرولتر من تعليق ET12567/ESAC/pR9604 وتخلط مع 200 ميكرولتر من التعليق C.
- لوحة 150 ميكرولتر من خليط الاقتران على لوحة أغار SFM تفتقر إلى المضادات الحيوية.
- احتضان في 30 درجة مئوية لمدة 16 ساعة.
- تغطية لوحات مع 1 مل من محلول المضادات الحيوية (وفقا لمقاومة البلازميد). بعد التجفيف، احتضان في 30 درجة مئوية لمدة 4-7 أيام.
ملاحظة: هنا، تم إعداد محلول يحتوي على 1.0 ملغم/مل ثيوستبتون و0.5 ملغم/مل حمض نالديكسيك. - الشرائط الطاردة على لوحات SFM أغار التي تحتوي على ثيوستبتون (50 ملغ/مل) وحمض ناليديكسيك (25 ملغم/مل). احتضان في 30 درجة مئوية.
- الشرائط exconjugants على أغار SFM التي تحتوي على حمض ناليديك ic فقط.
- إجراء تحليل PCR مع مستعمرات معزولة للتأكد من أن مجموعة الجينات بأكملها قد تم نقلها إلى مضيف S. coelicolor M1146.
4- زراعة السلالة
- للحصول على التشكيل الجانبي الأيضي ، تلقيح 1/100 من ثقافة السلالة المسبقة في وسائط التخمير المناسبة وفي ظل الظروف الثقافية المناسبة.
- ثقافات الطرد المركزي في 2200 × ز لمدة 10 دقيقة.
- تنفيذ استخراج وفقا لفئة من مجمع الفائدة40.
5 - اكتساب أطياف الكتلة والإعداد لتحليل الناتج القومي الإجمالي
- للحصول على بيانات MS/MS، برنامج HPLC مناسبة وطرق قياس الطيف الكتلي باستخدام برنامج التحكم. يمكن تحليل تحليل قياس الطيف الكتلي عالي الدقة والمنخفض المعتمد على البيانات (DDA).
ملاحظة: بشكل عام، حل 1 ملغ/مل من عينات استخراج الخام المعقدة مثالية. هناك حاجة إلى تخفيف لاستخراج أقل تعقيدا. وتجدر الإشارة إلى أن شبكات MS/MS هي الشبكة الجزيئية القابلة للكشف في ظل ظروف الطيف الكتلي المعينة. - تحويل أطياف الكتلة إلى تنسيق .mzXML باستخدام MSConvert من Proteowizard (وجدت في < http://proteowizard.sourceforge.net/>). يتم توضيح معلمات الإدخال للتحويل في الشكل 3. البيانات من برامج جميع الشركات تقريبا متوافقة.
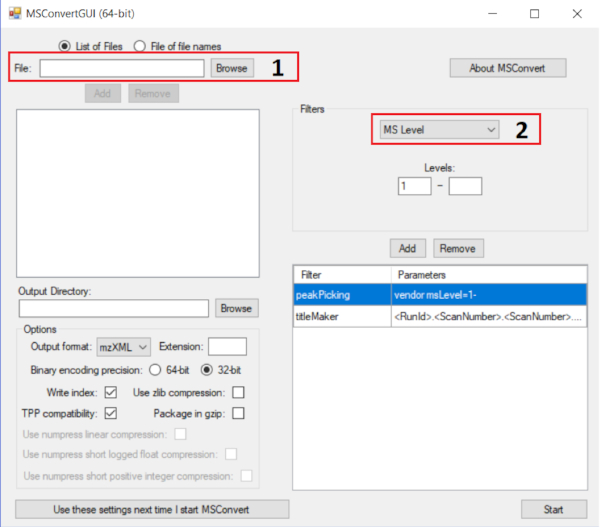
الشكل 3: استخدام MsConvert لتحويل ملفات MS إلى ملحق mzXML. يتم عرض المعلمة الصحيحة لتحليل GNPS. الإرشادات هي كما يلي: إضافة كافة ملفات MS في المربع 1 وإضافة تصفية بيك بيك الذروة في المربع 2; لهذا المرشح، استخدم بائع الخوارزمية؛ اضغط على بداية وعمليات التحويل ستتبع. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- تحميل ملفات LC-MS/MS المحولة إلى قاعدة بيانات GNPS. يتوفر خياران: استخدام بروتوكول نقل الملفات (FTP) أو مباشرة في مستعرض من خلال النظام الأساسي عبر الإنترنت.
ملاحظة: تتوفر معلومات مفصلة حول كيفية تثبيت ونقل البيانات إلى GNPS على الموقع :https://ccms-ucsd.github.io/GNPSDocumentation/fileupload/>
6 - تحليل الناتج القومي الإجمالي
- بعد إنشاء حساب في GNPS (وجدت في ، تسجيل الدخول إلى الحساب الذي تم إنشاؤه حدد إنشاء شبكة الجزيئية. إضافة عنوان وظيفي.
- الخيارات الأساسية: حدد ملفات mzXML لتنفيذ الشبكة الجزيئية. ويمكن تنظيمها في ما يصل إلى ست مجموعات. حدد المكتبات لروتين النسخ المتماثل(الشكل 4).
ملاحظة: هذه المجموعات لا تتداخل مع بناء الشبكة الجزيئية. سيتم استخدام هذه المعلومات فقط للتمثيل الرسومي.
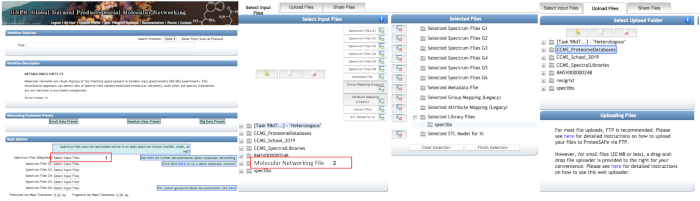
الشكل 4: استخدام منصة GNPS عبر الإنترنت لإجراء تحليل الشبكة الجزيئية. يتم اختيار ملفات mzXML بالنقر في المربع 1. في مربع الحوار المفتوح، يمكن تحديد الملفات من مجلد شخصي (الإطار 2) أو تحميلها في علامة التبويب الثانية باستخدام رافع ملفات السحب والإفلات (أقل من 20 ميغابايت). يمكن تجميع الملفات في ما يصل إلى ست مجموعات. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- حدد السلائف الأيون التسامح الشامل وتجزئة التسامح كتلة أيون 0.02 دا و 0.05 دا، على التوالي.
ملاحظة: لدى GNPS أنواع مختلفة من الصرامة المتاحة استنادًا إلى 1) مدى دقة بيانات MS/MS و 2) مدى دقة الاقتران. الخيارات الأساسية: في هذا المجلد، فمن الممكن لتعيين السلائف أيون التسامح الشامل وتجزئة أيون التسامح الشامل. وتستخدم هذه البارامترات كدليل لتحديد مدى دقة أيون السلائف وأيون الشظايا. تعتمد التحملات الجماعية المحددة على دقة ودقة مطياف الكتلة المستخدم. - خيارات الشبكة المتقدمة: حدد المعلمات وفقًا للشكل 5. تؤثر هذه المعلمات بشكل مباشر على حجم كتلة الشبكة وشكلها. معلمة أخرى في قسم علامات التبويب المتبقية للمستخدمين المتقدمين. وبالتالي، اترك القيم الافتراضية.
ملاحظة: يمكن قراءة المعلمات المتقدمة في وثائق GNPS (الموجودة في
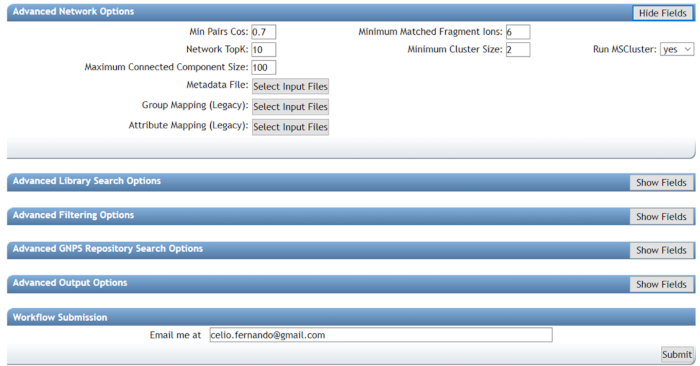
الشكل 5: استخدام الناتج القومي الإجمالي لإجراء تحليل الشبكة الجزيئية (خيارات متقدمة). سوف Min Pair Cos تؤثر بشكل مباشر على حجم الكتل، حيث ستؤدي القيم العالية إلى الجمع بين المركبات ذات الصلة الوثيقة والقيم المنخفضة في الجمع بين المركبات ذات الصلة عن بعد. يجب تجنب استخدام القيم المنخفضة جداً. يمثل الحد الأدنى من الأجزاء المتطابقة عدد الأجزاء المشتركة بين أطياف تجزئة اثنين يتم ربطها في الشبكة. معاً، كل من المعلمات توجيه تنسيق الشبكة; القيم المنخفضة سوف تتجمع أكثر المركبات ذات الصلة عن بعد والعكس بالعكس. استخدام القيم المناسبة سوف تساعد كثيرا توضيح المركب. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- اختر عنوان بريد إلكتروني لتلقي تنبيه عند الانتهاء من العمل، وأرسل الوظيفة.
7 - تحليل نتائج الناتج القومي الإجمالي
- تسجيل الدخول إلى GNPS. حدد الوظائف > الوظيفة المنشورة > تم لفتح الوظيفة. سيتم فتح صفحة ويب كما هو موضح في الشكل 6. سيتم عرض جميع النتائج التي تم الحصول عليها من الشبكات الجزيئية.
- حدد عرض العائلات الطيفية (في مصور شبكة المستعرض) لرؤية جميع مجموعات الشبكة (المربع الأحمر، الشكل 6).
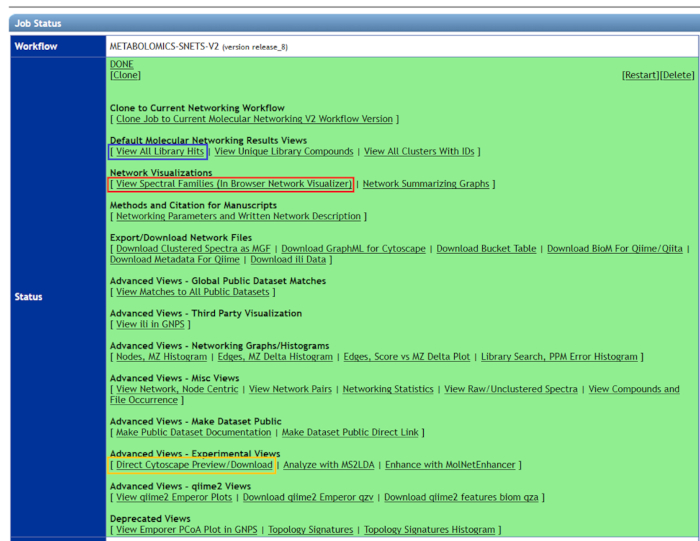
الشكل 6: استخدام الناتج القومي الإجمالي لتصور نتائج الشبكة الجزيئية. ويمكن رؤية جميع المجموعات المركبة ذات الصلة في عرض الأسر الطيفية (مربع أحمر). لتصور عدد مرات مشاهدة المكتبة فقط، يجب تحديد "عرض كافة الزيارات للمكتبة" (المربع الأزرق). للحصول على تمثيل رسومي أفضل لنتائج الشبكة الجزيئية ، يجب تنزيل "معاينة Cytoscape المباشرة" (المربع الأصفر) ، ويجب استخدام أحدث إصدار من Cytoscape. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- سيتم عرض قائمة مع جميع مجموعات الشبكات الجزيئية التي تم إنشاؤها. إذا تم اختيار بحث المكتبة لتوليد النتائج، سيتم عرض تحديد الجزيئات المؤقتة في AllIDs. حدد إظهار لتصورها.
ملاحظة: يمكن دفع تحليلات البيانات للحصول على نتائج أخرى (أي تعدين الجينوم، والدراسات البيولوجية، وجزيئات إزالة النسخ المتماثل للمكتبات، وما إلى ذلك). - لتحليل كتلة الشبكة الجزيئية، حدد شبكة التصور.
ملاحظة: تتكون كل مجموعة من العقد (الدوائر) والحواف، والتي تمثل الجزيئات والتشابه الجزيئي، على التوالي. سيتم تمييز الجزيئات المنسوخة كعقدة زرقاء في مصور شبكة المستعرض عبر الإنترنت. - في مربع تسميات العقدة، حدد الكتلة الأصلية (مربع أحمر، الشكل 7).
- في مربع تسميات الحافة، حدد Cosine أو DeltaMZ لمراقبة تشابه العقدة أو الفرق الشامل بين العقد، على التوالي (مربع أصفر، الشكل 7).
- في حالة التحليلات متعددة المجموعات، انقر فوق رسم الفطائر في مربع تلوين العقدة لمراقبة التردد الذي تظهر فيه كل عقدة في كل مجموعة (المربع الأزرق، الشكل 7).
ملاحظة: الخيارات الأخرى ممكنة، ولكن تلك المقترحة أعلاه هي الأمثل لمشروح العقد الكتلة وكشف بنياتها.
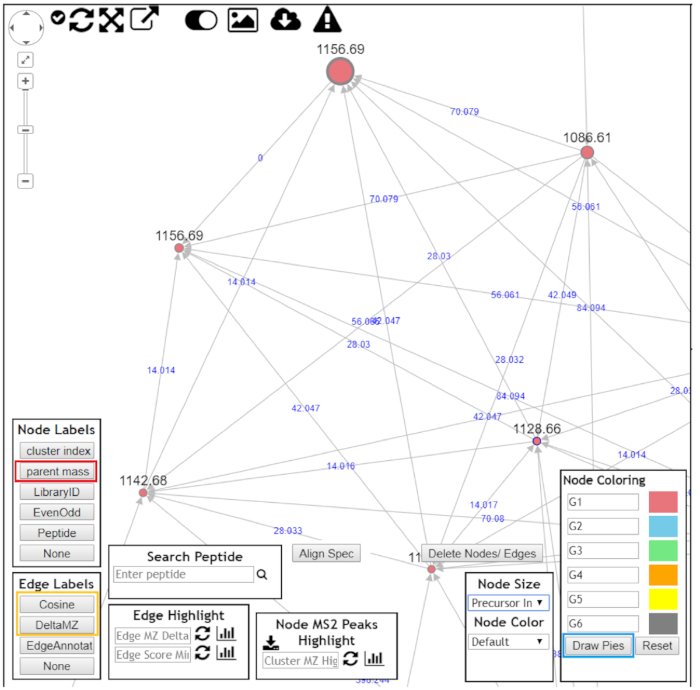
الشكل 7: استخدام الناتج القومي الإجمالي لتصور نتائج الكتلة الجزيئية. بعد فتح المجموعات الجزيئية لتصور أفضل للبيانات، يجب اختيار ما يلي: "كتلة الأصل" كتسميات عقدة (مربع أحمر)؛ "DeltaMZ" كتسميات حافة (مربع أصفر)؛ و "رسم الفطائر" كما لون العقدة (مربع أزرق). التنقل من خلال الكتلة الجزيئية ومحاولة لتعليقات توضيحية جميع العقد. يرجى الضغط هنا لعرض نسخة أكبر من هذا الرقم.
- لمشاهدة كافة مشاهدات المكتبة، حدد عرض كافة مشاهدات المكتبة (المربع الأزرق، الشكل 7).
ملاحظة: أيضا، يمكن تحميل MNW في "معاينة Cytoscape مباشرة / تحميل" (مربع أصفر، الشكل 7)،ويمكن فتح الملف في منصة Cytoscape (وجدت في ) لمزيد من الخيارات في هيكل رسومية. - وثمة حاجة إلى تأكيد يدوي للمركبات غير المنسوخة وتوضيح هيكل المركبات ذات الصلة. افتح أطياف التجزئة مباشرة في منصة GNPS أو في الملفات الخام الأصلية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
وقد تجسد البروتوكول بنجاح باستخدام مزيج من تعدين الجينوم، والتعبير غير المتجانس، ونهج التعليمات الموجهة بالتصلب المتعدد/الشفرة للوصول إلى جزيئات نظائرها المتخصصة الجديدة. يتم تمثيل سير عمل الجينوم إلى الجزيء للهدف ، فالينوميسين (VLM) ، في الشكل 8. تم تحليل Streptomyces sp. CBMAI 2042 مشروع الجينوم في silico، ثم تم تحديد الكتلة الجينية VLM ونقلها إلى مضيف غير ياللوغوس. وزرعت سلالات من النوع الهيتيروغلوج والبري في ثلاثة توائم باستخدام ظروف التخمير المناسبة، مقسمة مع خلات الإيثيل، وترك...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
الميزة الأقوى لهذا البروتوكول هي قدرته على إزالة الملامح الأيضية بسرعة وجسر المعلومات الجينومية مع بيانات التصلب المتعدد من أجل توضيح هياكل الجزيئات الجديدة ، وخاصة نظائرها الهيكلية2. واستناداً إلى المعلومات الجينية، يمكن تحري الأنماط الكيميائية للمنتجات الطبيعية المختلفة، مثل البوليكيتتيدات (PK)، والببتيدات غير الخاضعة للرب (NRP)، والمنتجات الطبيعية الجليكوزية (GNP)، وكذلك BGCs. وهكذا، يمكن استنساخ BGC لتوجيه إنتاج مركب جديد أو نظائرها غير معروفة تتعلق BGC معروفة بالفعل، التي تيسرها أوجه التشابه ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
وليس لدى صاحبي البلاغ ما يكشفان عنه.
شكر وتقدير
تم تقديم الدعم المالي لهذه الدراسة من قبل مؤسسة ساو باولو للأبحاث - FAPESP (2019/10564-5، 2014/12727-5 و2014/50249-8 إلى L.G.O؛ 2013/12598-8 و 2015/01013-4 إلى R.S.؛ و 2019/08853-9 إلى C.F.F.A). حصلت شركة B.S.P وC.F.F.A. و L.G.O. على زمالات من المجلس الوطني للتنمية العلمية والتكنولوجية - CNPq (205729/2018-5 و 162191/2015-4 و 313492/2017-4). كما أن L.G.O. ممتنة للدعم المقدم من المنح ة من قبل برنامج المرأة في العلوم (2008، الطبعة البرازيلية). جميع المؤلفين يعترفون بـ CAPES (التنسيق لتحسين موظفي التعليم العالي) لدعمبرامج ما بعد التخرج في البرازيل.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| أسيتونيتريل | تيديا | AA1120-048 | HPLC الصف |
| أجار | أكسويد | LP0011 | NA |
| أبراميسين | سيجما ألدريتش | A2024 | NA |
| Carbenicillin | Sigma Aldrich | C9231 | NA |
| أجهزة الطرد المركزي | Eppendorf | NA | 5804 |
| Chloramphenicol | Sigma Aldrich | C3175 | NA |
| العمود C18 | Agilent Technologies | NA | ZORBAX RRHD Extend-C18 ، 80 & Aring ؛ 2.1 × 50 مم ، 1.8 & micro ؛ م ، 1200 بار حد الضغط P / N 757700-902 |
| Kanamycin | Sigma Aldrich | K1377 | NA |
| Manitol P.A.- A.C.S. | Synth | NA | NA |
| Microcentrifuge | Eppendorf | NA | 5418 |
| Nalidixic acid | Sigma Aldrich | N4382 | NA |
| Phusion Flash High-Fidelity PCR Master Mix | ThermoFisher Scientific | F548S | NA |
| Q-TOF مطياف الكتلة | تقنيات Agilent | NA | 6550 iFunnel Q-TOF LC / MS |
| Sacarose P.A.- A.C.S. | موالفة | NA | NA |
| شاكر / حاضنة | Marconi | MA420 | NA |
| كلوريد الصوديوم | موالفة | NA | P. A. - |
| ACS مستخلص الصويا | NA | NA | NA |
| السكروز | سينث | NA | P. A. - ACS |
| الدورات الحرارية | Eppendorf | NA | Mastercycler Nexus Gradient |
| Thiostrepton | Sigma ألدريتش | T8902 | NA |
| تريبتون | أكسويد | LP0042 | NA |
| تريبتون مرق الصويا | أكسويد | CM0129 | NA |
| UPLC | Agilent Technologies | NA | 1290 Infinity LC System |
| مستخلص الخميرة | Oxoid | LP0021 | NA |
المراجع
- Davies, J. Specialized microbial metabolites: functions and origins. The Journal of Antibiotics. 66 (7), Tokyo. 361-364 (2013).
- Ziemert, N., Alanjary, M., Weber, T. The evolution of genome mining in microbes - a review. Natural Product Reports. 33 (8), 988-1005 (2016).
- Zerikly, M., Challis, G. L. Strategies for the Discovery of New Natural Products by Genome Mining. ChemBioChem. 10 (4), 625-633 (2009).
- Gomez-Escribano, J. P., Bibb, M. J. Heterologous expression of natural product biosynthetic gene clusters in Streptomyces coelicolor: from genome mining to manipulation of biosynthetic pathways. Journal of Industrial Microbiology & Biotechnology. 41 (2), 425-431 (2014).
- Medema, M. H., et al. Minimum Information about a Biosynthetic Gene cluster. Nature Chemical Biology. 11 (9), 625-631 (2015).
- Lautru, S., Deeth, R. J., Bailey, L. M., Challis, G. L. Discovery of a new peptide natural product by Streptomyces coelicolor genome mining. Nature Chemical Biology. 1 (5), 265-269 (2005).
- Chiang, Y. -M., et al. Molecular Genetic Mining of the Aspergillus Secondary Metabolome: Discovery of the Emericellamide Biosynthetic Pathway. Chemistry & Biology. 15 (6), 527-532 (2008).
- Huang, T., et al. Identification and Characterization of the Pyridomycin Biosynthetic Gene Cluster of Streptomyces pyridomyceticus NRRL B-2517. Journal of Biological Chemistry. 286 (23), 20648-20657 (2011).
- Udwary, D. W., et al. Genome sequencing reveals complex secondary metabolome in the marine actinomycete Salinispora tropica. Proceedings of the National Academy of Sciences. 104 (25), 10376-10381 (2007).
- Gross, H., et al. The Genomisotopic Approach: A Systematic Method to Isolate Products of Orphan Biosynthetic Gene Clusters. Chemistry & Biology. 14 (1), 53-63 (2007).
- Spohn, M., Wohlleben, W., Stegmann, E. Elucidation of the zinc-dependent regulation in Amycolatopsis japonicum enabled the identification of the ethylenediamine-disuccinate ([S,S ]-EDDS) genes. Environmental Microbiology. 18 (4), 1249-1263 (2016).
- Thaker, M. N., Waglechner, N., Wright, G. D. Antibiotic resistance-mediated isolation of scaffold-specific natural product producers. Nature Protocols. 9 (6), 1469-1479 (2014).
- Katz, M., Hover, B. M., Brady, S. F. Culture-independent discovery of natural products from soil metagenomes. Journal of Industrial Microbiology & Biotechnology. 43, 129-141 (2016).
- Quinn, R. A., et al. Molecular Networking as a Drug Discovery, Drug Metabolism, and Precision Medicine Strategy. Trends in Pharmacological Sciences. 38 (2), 143-154 (2017).
- Yang, J. Y., et al. Molecular Networking as a Dereplication Strategy. Journal of Natural Products. 76 (9), 1686-1699 (2013).
- Lommen, A. MetAlign: Interface-Driven, Versatile Metabolomics Tool for Hyphenated Full-Scan Mass Spectrometry Data Preprocessing. Analytical Chemistry. 81 (8), 3079-3086 (2009).
- Katajamaa, M., Miettinen, J., Oresic, M. MZmine: toolbox for processing and visualization of mass spectrometry based molecular profile data. Bioinformatics. 22 (5), 634-636 (2006).
- Pluskal, T., Castillo, S., Villar-Briones, A., Orešič, M. MZmine 2: Modular framework for processing, visualizing, and analyzing mass spectrometry-based molecular profile data. BMC Bioinformatics. 11 (1), 395(2010).
- Tautenhahn, R., Patti, G. J., Rinehart, D., Siuzdak, G. XCMS Online: A Web-Based Platform to Process Untargeted Metabolomic Data. Analytical Chemistry. 84 (11), 5035-5039 (2012).
- Kuhl, C., Tautenhahn, R., Böttcher, C., Larson, T. R., Neumann, S. CAMERA: An Integrated Strategy for Compound Spectra Extraction and Annotation of Liquid Chromatography/Mass Spectrometry Data Sets. Analytical Chemistry. 84 (1), 283-289 (2012).
- Katajamaa, M., Orešič, M. Data processing for mass spectrometry-based metabolomics. Journal of Chromatography A. 1158, 318-328 (2007).
- Liu, W. -T., et al. Interpretation of Tandem Mass Spectra Obtained from Cyclic Nonribosomal Peptides. Analytical Chemistry. 81 (11), 4200-4209 (2009).
- Ng, J., et al. Dereplication and de novo sequencing of nonribosomal peptides. Nature Methods. 6 (8), 596-599 (2009).
- Liaw, C., et al. Vitroprocines, new antibiotics against Acinetobacter baumannii, discovered from marine Vibrio sp. QWI-06 using mass-spectrometry-based metabolomics approach. Scientific Reports. 5 (1), 1-11 (2015).
- Kang, K. B., et al. Targeted Isolation of Neuroprotective Dicoumaroyl Neolignans and Lignans from Sageretia theezans Using in Silico Molecular Network Annotation Propagation-Based Dereplication. Journal of Natural Products. 81 (8), 1819-1828 (2018).
- Wang, M., et al. Sharing and community curation of mass spectrometry data with Global Natural Products Social Molecular Networking. Nature Biotechnology. 34 (8), 828-837 (2016).
- Doroghazi, J. R., et al. A roadmap for natural product discovery based on large-scale genomics and metabolomics. Nature Chemical Biology. 10 (11), 963-968 (2014).
- Medema, M. H., et al. antiSMASH: rapid identification, annotation and analysis of secondary metabolite biosynthesis gene clusters in bacterial and fungal genome sequences. Nucleic Acids Research. 39, 339-346 (2011).
- Weber, T., et al. antiSMASH 3.0-a comprehensive resource for the genome mining of biosynthetic gene clusters. Nucleic Acids Research. 43, 237-243 (2015).
- Blin, K., et al. antiSMASH 5.0: updates to the secondary metabolite genome mining pipeline. Nucleic Acids Research. 47, 81-87 (2019).
- Watrous, J., et al. Mass spectral molecular networking of living microbial colonies. Proceedings of the National Academy of Sciences. 109 (26), 1743-1752 (2012).
- Paulo, B. S., Sigrist, R., Angolini, C. F. F., De Oliveira, L. G. New Cyclodepsipeptide Derivatives Revealed by Genome Mining and Molecular Networking. ChemistrySelect. 4 (27), 7785-7790 (2019).
- Gonzaga de Oliveira, L., Sigrist, R., Sachetto Paulo, B., Samborskyy, M. Whole-Genome Sequence of the Endophytic Streptomyces sp. Strain CBMAI 2042, Isolated from Citrus sinensis. Microbiology Resource Announcements. 8 (2), 1-2 (2019).
- Aziz, R. K., et al. The RAST Server: Rapid Annotations using Subsystems Technology. BMC Genomics. 9 (1), 75(2008).
- Nah, H. -J., Pyeon, H. -R., Kang, S. -H., Choi, S. -S., Kim, E. -S. Cloning and Heterologous Expression of a Large-sized Natural Product Biosynthetic Gene Cluster in Streptomyces Species. Frontiers in Microbiology. 8, 1-10 (2017).
- Zhang, J. J., Tang, X., Moore, B. S. Genetic platforms for heterologous expression of microbial natural products. Natural Product Reports. 36 (9), 1313-1332 (2019).
- Alduina, R., et al. Artificial chromosome libraries of Streptomyces coelicolor A3(2) and Planobispora rosea. FEMS Microbiology Letters. 218 (1), 181-186 (2003).
- Jones, A. C., et al. Phage P1-Derived Artificial Chromosomes Facilitate Heterologous Expression of the FK506 Gene Cluster. PLoS One. 8 (7), 69319(2013).
- Gomez-Escribano, J. P., Bibb, M. J. Engineering Streptomyces coelicolor for heterologous expression of secondary metabolite gene clusters. Microbial Biotechnology. 4 (2), 207-215 (2011).
- Cannell, R. J. P. Natural Products Isolation. , Humana Press. Totowa, NJ. (1998).
- Kersten, R. D., et al. A mass spectrometry-guided genome mining approach for natural product peptidogenomics. Nature Chemical Biology. 7 (11), 794-802 (2011).
- Kersten, R. D., et al. Glycogenomics as a mass spectrometry-guided genome-mining method for microbial glycosylated molecules. Proceedings of the National Academy of Sciences. 110 (47), 4407-4416 (2013).
- Liu, W., et al. MS/MS-based networking and peptidogenomics guided genome mining revealed the stenothricin gene cluster in Streptomyces roseosporus. The Journal of Antibiotics. 67 (1), Tokyo. 99-104 (2014).
- Duncan, K. R., et al. Molecular Networking and Pattern-Based Genome Mining Improves Discovery of Biosynthetic Gene Clusters and their Products from Salinispora Species. Chemistry & Biology. 22 (4), 460-471 (2015).
- Cao, L., et al. MetaMiner: A Scalable Peptidogenomics Approach for Discovery of Ribosomal Peptide Natural Products with Blind Modifications from Microbial Communities. Cell Systems. , (2019).
- Chen, L. -Y., Cui, H. -T., Su, C., Bai, F. -W., Zhao, X. -Q. Analysis of the complete genome sequence of a marine-derived strain Streptomyces sp. S063 CGMCC 14582 reveals its biosynthetic potential to produce novel anti-complement agents and peptides. PeerJ. 7 (1), 6122(2019).
- Kim Tiam, S., et al. Insights into the Diversity of Secondary Metabolites of Planktothrix Using a Biphasic Approach Combining Global Genomics and Metabolomics. Toxins. 11 (9), 498(2019).
- Özakin, S., Ince, E. Genome and metabolome mining of marine obligate Salinispora strains to discover new natural products. Turkish Journal of Biology. 43 (1), 28-36 (2019).
- Trivella, D. B. B., de Felicio, R. The Tripod for Bacterial Natural Product Discovery: Genome Mining, Silent Pathway Induction, and Mass Spectrometry-Based Molecular Networking. mSystems. 3 (2), 00160(2018).
- Maansson, M., et al. An Integrated Metabolomic and Genomic Mining Workflow To Uncover the Biosynthetic Potential of Bacteria. mSystems. 1 (3), 1-14 (2016).
- Blin, K., Kim, H. U., Medema, M. H., Weber, T. Recent development of antiSMASH and other computational approaches to mine secondary metabolite biosynthetic gene clusters. Briefings in Bioinformatics. 20 (4), 1103-1113 (2019).
- Fisch, K. M. Biosynthesis of natural products by microbial iterative hybrid PKS-NRPS. RSC Advances. 3 (40), 18228-18247 (2013).
- Tatsuno, S., Arakawa, K., Kinashi, H. Analysis of Modular-iterative Mixed Biosynthesis of Lankacidin by Heterologous Expression and Gene Fusion. The Journal of Antibiotics. 60 (11), Tokyo. 700-708 (2007).
- Helfrich, E. J. N., Piel, J. Biosynthesis of polyketides by trans-AT polyketide synthases. Natural Product Reports. 33 (2), 231-316 (2016).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
