ويرد هنا وصف بروتوكول لدراسة الأحداث التي تحركها FcγRIIIa من قبل الأجسام المضادة العلاجية في الخلايا القاتلة الطبيعية البشرية. تسمح منصة التحفيز الاصطناعي هذه باستجواب وظائف التأثير المصبي مثل إزالة التجريح ، وإنتاج chemokine / cytokine ، ومسارات الإشارات بوساطة أجزاء FcγRIIIa و Fc من الأجسام المضادة المشاركة في الربط.
مقالة منهجية
تقييم أحداث الخلايا القاتلة الطبيعية البشرية مدفوعة بمشاركة FcγRIIIa في وجود أجسام مضادة علاجية
في هذه المقالة
ملخص
الملخص
آلية واحدة للعمل من أجل الفعالية السريرية من قبل الأجسام المضادة العلاجية هو تعزيز الوظائف ذات الصلة بالمناعة، مثل إفراز السيتوكين والسمية الخلوية، مدفوعة FcγRIIIa (CD16) أعرب عن الخلايا القاتلة الطبيعية (NK). وقد أدت هذه الملاحظات إلى البحوث التي تركز على أساليب لزيادة الأحداث التي تتوسط فيها مستقبلات Fc ، والتي تشمل إزالة moiety فوكوز وجدت على الجزء Fc من الأجسام المضادة. وقد أوضح مزيد من الدراسات التغيرات الميكانيكية في الإشارات والعمليات الخلوية والخصائص السامة للخلايا التي تزيد من نشاط ADCC مع الأجسام المضادة afucosylated. بالإضافة إلى ذلك، أظهرت دراسات أخرى الفوائد المحتملة لهذه الأجسام المضادة في تركيبة مع مثبطات جزيء صغير. وأظهرت هذه التجارب الآليات الجزيئية والخلوية الكامنة وراء فوائد استخدام الأجسام المضادة afucosylated في إعدادات الجمع. واستند العديد من هذه الملاحظات على اختبار تنشيط الاصطناعية في المختبر الذي تم تنشيط FcγRIIIa على خلايا ناغورني كاراباخ البشرية عن طريق الأجسام المضادة العلاجية. وفر هذا المقايسة المرونة لدراسة وظائف خلايا NK المثرى في المصب، مثل إنتاج السيتوكين والإزالة. وبالإضافة إلى ذلك، استخدم هذا المقايسة لاستجواب مسارات الإشارات وتحديد الجزيئات التي يمكن تحويرها أو استخدامها كمؤشرات بيولوجية. وأخيرا، أضيفت جزيئات علاجية أخرى (أي مثبطات جزيء صغير) إلى النظام لتوفير رؤى حول الجمع بين هذه العلاجات والأجسام المضادة العلاجية، وهو أمر ضروري في الفضاء السريري الحالي. تهدف هذه المخطوطة إلى توفير أساس تقني لإجراء هذا الفحص الاصطناعي لتنشيط خلايا NK البشرية. يوضح البروتوكول الخطوات الرئيسية لتنشيط الخلية بالإضافة إلى التطبيقات المحتملة المتلقين للمعلومات التي تتراوح من قراءات وظيفية إلى ملاحظات ميكانيكية أكثر.
المقدمة
على مدى العقود القليلة الماضية، كان هناك تركيز هائل على تطوير علاجات السرطان المستهدفة باستخدام الأجسام المضادة. تعمل الأجسام المضادة العلاجية، مثل تراستوزوماب وريتوكسيماب، من خلال آليات متعددة، بما في ذلك الوقاية من تضاؤل جزيئات الإشارات وتعبئة الجهاز المناعي1،2. ويتم إنجاز هذا الأخير من خلال السمية الخلوية المعتمدة على الأجسام المضادة (ADCC) ، والتي يتم فيها جلب الخلايا الليمفاوية التي تسمى خلايا القاتل الطبيعي (NK) إلى الخلية المستهدفة من قبل الأجسام المضادة1،2. عن طريق وضع الخلايا على مقربة من بعضها البعض، يتم تنشيط الخلية NK ويمكن lyse ورم / الخلية المستهدفة من خلال إفراز جزيئات التأثير3.
على المستوى الجزيئي، الجزء فاب من الأجسام المضادة يربط مستضد cognate أعرب عن الخلايا السرطانية، في حين أن الجزء Fc يشارك FcаRIIIa أعرب على خلايا NK لجمع الخلايا معا1،2. بعد مشاركة FcγRIIIa، مسارات الإشارات (أي، مسارات MAPK وPI3K) محرك إعادة ترتيب الهيكل الخلوي، وإنتاج السيتوكين، والسمية الخلوية4،5،6،7،8،9. وهكذا، ADCC هو حدث FcγRIIIa يحركها بوساطة خلايا ناغورني كاراباخ والأجسام المضادة.
ونظرا لأنه كان يعتقد أن ADCC هي آلية عمل لهذه الأجسام المضادة العلاجية ، فقد بحث الباحثون عن طرق لزيادة ADCC عن طريق تعديل الجسم المضاد. وكان أحد التعديلات إزالة فوكوز على سلسلة oligosaccharide تعلق على asparagine 297، مما يزيد من تقارب ملزمة من الجزء Fc من الأجسام المضادة إلى FcγRIIIa10،11،12. في الدراسات الحيوانية، أظهرت الفئران التي تتلقى أجساما مضادة مفوكوسلات أبطأ نمو الورم مقارنة مع الفئران تعامل مع نظيره fucosylated13. والأهم من ذلك، أظهر أوبينوتوزوماب (على سبيل المثال، غازيفا، وهو جهاز مضاد معتمد من الأفوكوسيلات) فعالية أفضل بالنسبة إلى ريتوكسيماب (على سبيل المثال، ريتوكسان، نظيره الفوكوسيلات) في المرضى الذين تم تشخيص إصابتهم بسرطان الدم الليمفاوي المزمن أو سرطان الغدد الليمفاوية الجريبي14،15.
وحتى وقت قريب، كانت الآليات الكامنة وراء زيادة ADCC عن طريق الأجسام المضادة afucosylated غير معروفة. جنبا إلى جنب مع حقيقة أن هناك العديد من البرامج البحثية تطوير الأجسام المضادة العلاجية للاستفادة من آليات FcγRIIIa يحركها لاستهداف الخلايا السرطانية، فمن الضروري لتطوير المقايسات في المختبر التي تدرس الجوانب الجزيئية والخلوية التي تروج لها هذه الأجسام المضادة. وهذا يوفر فهما أساسيا لآليات العمل وكذلك إمكانية اكتشاف المؤشرات الحيوية. على هذا النحو، تم تطوير اختبار التنشيط الاصطناعي لدراسة وظائف FcγRIIIa التي تعتمد على الأجسام المضادة بالإضافة إلى الإشارات والخصائص الخلوية8. من خلال هذه الدراسات، تم توضيح الآليات الكامنة وراء زيادة فعالية الأجسام المضادة afucosylated التي تعزيز تقارب ملزم يزيد الإشارات لتعزيز خصائص الخلوية والخصائص السامة للخلايا8.
الاتجاه الحالي في التجارب السريرية هو استخدام مزيج من الجزيئات العلاجية16. واحدة من المسارات الأكثر تحورا هو مسار PI3K ، مما دفع إلى جهد هائل في تطوير مثبطات جزيء صغير تستهدف مكونات هذا المسار17،18،19،20. ومع ذلك ، فإن كيفية تصرف هذه الجزيئات بالاشتراك مع الأجسام المضادة العلاجية غير معروفة نسبيا ، خاصة في التركيبات التي قد يؤثر فيها المثبط على الجزيئات التي تتطلب مسار PI3K من أجل العمل ، مثل تلك التي تحركها الأجسام المضادة العلاجية.
وتحقيقا لهذه الغاية، تم استخدام المقايسة في المختبر المستخدمة لدراسات الأجسام المضادة afucosylated أيضا لدراسة مزيج من مثبطات PI3K والأجسام المضادة العلاجية. حددت هذه الدراسات الخصائص الجزيئية لتثبيط PI3K على الأحداث العلاجية التي يحركها PI3K ووصف كيف يمكن للأجسام المضادة afucosylated تعويض هذا الفقدان للإشارة9. هذه النتائج ذات صلة لأنها تقدم إرشادات محتملة لتصميم التجارب السريرية. بالإضافة إلى ذلك ، أدت هذه السلسلة من التجارب أيضا إلى الملاحظات الأولى الموصوفة للتنظيم الحركي لمسار إشارات PI3K لتعديل نسخ وإنتاج chemokine / cytokine ، والتي قد تكون بمثابة علامات بيولوجية محتملة9.
تم تصميم اختبار التنشيط الاصطناعي في المختبر المستخدم لتحديد الخصائص الإشارات والخلوية الموصوفة أعلاه لدراسة الأحداث التي تحركها FcγRIIIa في خلايا NK بوساطة الأجسام المضادة في غياب الخلايا المستهدفة. بدون خلايا مستهدفة في النظام، يمكن أن تعزى جميع أحداث الإشارات والوظائف التي تمت ملاحظتها مباشرة إلى خلايا NK. في المقايسة المقدمة، يتم إضافة الأجسام المضادة إلى خلايا NK المنقى، وعند هذه النقطة يربط الجزء Fc fcγRIIIa. ويتبع ذلك الربط المتبادل للأجسام المضادة باستخدام مضاد لسلسلة الضوء المضادة للإنسان لتحفيز الخلايا بشكل مصطنع. الربط المتبادل للأجسام المضادة يحاكي ربط مستضد الهدف لتوليد منصة الإشارات التي تثير أحداث المصب. اعتمادا على طول التحفيز، يمكن للباحثين تقييم الإشارات والعمليات الخلوية والخصائص السامة للخلايا، ووظائف التأثير8،9. وبالمثل، يوفر هذا المقايسة أيضا مرونة في دراسة هذه الأحداث عندما يتم الجمع بين الأجسام المضادة مع جزيئات أخرى9.
معا، وهذا هو المثل الأعلى في المختبر المقايسة لدراسة الأجسام المضادة العلاجية التي تثير استجابات خلايا NK من خلال FcγRIIIa بهم كجزء من آلية العمل. يصف هذا البروتوكول أداء هذا الفحص التنشيط في المختبر ويوفر نظرة ثاقبة قراءات المختلفة التي يمكن تنفيذها.
البروتوكول
البروتوكول التالي هو وفقا للمبادئ التوجيهية للجنة أخلاقيات البحوث البشرية iQ العلوم البيولوجية.
1. عزل PBMCs وإثراء / تنقية خلايا NK
ملاحظة: يمكن أيضا إجراء طرق أخرى لعزل خلايا الدم المحيطي أحادية النوى (PBMCs) والإثراء / التنقية.
- رسم 200 مل من الدم في ظل ظروف منظمة في أنبوب يحتوي على الهيبارين.
- أضف 15 مل من متوسط تدرج الكثافة إلى أنبوب سعة 50 مل مع دمج حاجز مسامي. تدور في أنبوب 1000 × ز لمدة 30 ق.
- إضافة 12.5 مل من الدم في أنبوب تليها آخر 12.5 مل من برنامج تلفزيوني، وعكس بلطف 3x. تدور الأنبوب في 800 × ز لمدة 15 دقيقة في درجة حرارة الغرفة (RT) مع عدم وجود فواصل.
- إعداد أنبوب مخروطي 50 مل مع 40 مل من برنامج تلفزيوني لكل أنبوب مع حاجز مسامية في حين أن الخلايا تدور.
- قم بإزالة الأنابيب بعناية وفحصها بعد الطرد المركزي. تحقق من وجود طبقة رقيقة وبيضاء واضحة من PBMCs فوق الحاجز المسامي ، بين ترسيم 20 مل و 25 مل على أنبوب 50 مل.
- إزالة بعناية أكبر قدر ممكن من السائل من أعلى باستخدام ماصة دون إزعاج رقيقة، طبقة PBMC الأبيض.
- مع ماصة مصلية نظيفة 10 مل، قم بإزالة طبقة PBMC برفق بالإضافة إلى الطبقة السائلة الصافية المصفرة وصولا إلى فلتر الأنبوب.
- طرد PBMCs والسائل في 50 مل مخروطية تحتوي على برنامج تلفزيوني أعدت في الخطوة 1.4. أنابيب الدوران في RT و 300 × ز لمدة 5 دقائق.
- يستنشق غسل برنامج تلفزيوني وإضافة 40 مل إضافية من برنامج تلفزيوني. أنابيب الدوران في RT و 300 × ز لمدة 5 دقائق.
- بعد الغسيل، عد الخلايا وإعادة إنفاقها في 40 ميكرولتر من 2٪ BSA/ PBS لكل 1 × 10⁷ خلايا.
- انتقل إلى عزل خلايا NK باستخدام الطريقة المفضلة. وتشمل الخيارات اليدوية أو الآلية المغناطيسية القائمة على حبة الفرز9،21. ويمكن أيضا أن يتم فرز الخلايا المضانة تنشيط22.
- إزالة aliquot صغيرة من الخلايا لتحديد نقاء خلايا NK عن طريق قياس التدفق الخلوي. تتضمن إستراتيجية Gating ما يلي: بوابة على الخلايا الحية استنادا إلى ملف تعريف مبعثر إلى الأمام مقابل الجانب ، ثم تقييم النقاء استنادا إلى علامات NK (على سبيل المثال ، CD3 ، CD56) في السكان الأحياء المحددين. النقاء النموذجي هو >95٪.
- بعد اكتمال العزلة، تدور الخلايا في RT و 300 × ز لمدة 5 دقائق إلى بيليه و أسبيرات.
- إعادة إنفاق بيليه الخلية إلى 1 × 10⁷ خلايا / مل في RPMI 1640 مع المواد الغذائية، 10٪ FBS المعطل حراريا، 1 mM بيروفات الصوديوم، 55 mM 2-ME، و 10 MM HEPES (درجة الحموضة = 7.2).
2. تنشيط الأجسام المضادة بوساطة خلايا NK عبر FcγRIIIa
- تعيين جهاز طرد مركزي صغير المبردة إلى 4 درجة مئوية.
- الاستغناء عن 1 × 10⁶ (100 ميكرولتر من) خلايا NK إعادة إنفاقها في أنبوب 1.5 مل (ق) ومكان على الجليد.
ملاحظة: يمكن الاستغناء عن الخلايا في لوحة U-bottom جيدا 96 إذا كان هناك العديد من العينات. - إعداد 1 ميكرولتر من 100 ميكروغرام / مل ريتوكسيماب (أو الأجسام المضادة ذات الأهمية) لكل عينة وإضافة 1 ميكرولتر إلى الخلايا لتركيز نهائي من 1 ميكروغرام / مل الأجسام المضادة.
ملاحظة: يمكن إضافة جزيئات أخرى إلى الخلايا في هذه المرحلة أو قبل ذلك لتقييم الآثار المركبة. هنا، تم استخدام ريتيكسوماب للتحفيز. في الدراسات السابقة، تمت إضافة مثبطات جزيء صغير إلى التحفيز9. - احتضان العينة على الجليد لمدة 30 دقيقة. أثناء الحضانة، قم بإعداد 50 ميكرولتر من 50 ميكروغرام/مل مضاد لسلسلة الضوء κ لكل عينة في الوسائط ودافئة إلى 37 درجة مئوية على كتلة حرارية أو في حمام مائي.
- بعد احتضان الخلايا على الجليد، أضف 1 مل من الوسائط الباردة الجليدية وتدور عند 135 × ز لمدة 5 دقائق عند 4 درجات مئوية. يغسل مرة أخرى مع 1 مل من الجليد الباردة وسائل الإعلام.
- أسبيرات supernatant بعد غسل الماضي وإضافة 50 ميكرولتر من خليط سلسلة الضوء المضادة للإنسان κ أعدت في الخطوة 2.5.
- احتضان عينات على الفور للمستخدم النهائي تحديد النقاط الزمنية في 37 درجة مئوية على كتلة الحرارة أو في حمام مائي.
- توقف عن التحفيز بإضافة 1 مل من الوسائط الباردة الجليدية وتدور على الفور عينات في جهاز طرد مركزي مبرد عند 135 × ز لمدة 5 دقائق. اغسل مرة أخرى مع 1 مل من الوسائط الباردة.
3. تطبيقات المصب وقراءات
- استجواب جزيئات الإشارات في خلايا NK التي تحفز FcγRIIIa عن طريق تحليل البقع الغربية
ملاحظة: يمكن استخدام أجهزة مختلفة لفصل البروتين ونقل الأغشية.- بعد الغسيل الأخير مع وسائط الجليد البارد (الخطوة 2.8) ، تختلط خلايا الليس مع 20 ميكرولتر من العازلة RIPA التي تحتوي على مثبطات الفوسفاتاز والبروتيز لمدة 30 دقيقة على الجليد.
- أنابيب الدوران عند 2100 × ز لمدة 15 دقيقة عند 4 درجات مئوية. نقل lysate إلى أنبوب نظيف 1.5 مل وإضافة الكواشف اللازمة لفصل البروتين.
- بروتينات منفصلة على هلام SDS-PAGE ونقلها إلى غشاء نيتروسيلولوس أو PVDF باتباع البروتوكولات القياسية.
- كتلة والتحقيق في الغشاء وفقا لصحيفة بيانات الشركة المصنعة للأجسام المضادة الكشف الأولي (هنا، PAKT، pPRAS 40، وpERK1/2 استخدمت).
- إضافة HRP الأجسام المضادة الثانوية وشفة chemiluminescence وفقا لتوصيات الشركة المصنعة على غشاء PVDF. استخدام فيلم الأشعة السينية أو أداة الكشف لتصور (هنا، تم الكشف عن pAKT في 60 كيلودا، pPRAS40 في 40 كيلودا، وpERK1/2 في 42 كيلودا و 44 كيلودا).
- عزل مرنا والتحضير لتحليل التعبير الجيني للخلايا NK FcγRIIIa حفز (جدول المواد)
- بعد الوصول إلى نقطة زمنية للتحفيز (الخطوة 2.7)، ضع الأنبوب على الجليد وتدور على الفور في جهاز طرد مركزي مبرد عند 135 × غرام لمدة 5 دقائق (على غرار الخطوة 2.8).
- إزالة supernatant وغسل 2x مع 1 مل من الجليد الباردة PBS.
- خلايا الليس باستخدام استخراج الحمض النووي الريبي الإيزوثيوسيانات جوانيديوم (جدول المواد). استخدام 1 ميكروغرام من مرنا لأداء النسخ العكسي باستخدام hexamers عشوائي مع عدة تجارية (جدول المواد).
ملاحظة: يمكن استخدام أي طريقة لاستخراج الحمض النووي الريبي أو توليف cDNA9،23،24. - تجميد cDNA عند -20 درجة مئوية حتى تحليل التعبير الجيني.
- تقييم إعادة ترتيب الهيكل الخلوي في خلايا NK المحفزة من FcγRIIIa
- بعد الغسيل الأخير مع وسائط الجليد البارد (الخطوة 2.8) ، أعيد إنفاق بيليه الخلية مع 50 ميكرولتر من 3.7٪ بارافورمالديهايد لمدة 10 دقائق في RT.
- إضافة 1 مل من برنامج تلفزيوني وتدور في 135 × ز لمدة 5 دقائق في RT. كرر هذا الغسيل مرة أخرى.
- إضافة 100 ميكرولتر من 0.1٪ تريتون X-100/PBS لمدة 5 دقائق لبيرمابيليز الخلايا، وتدور الخلايا في 135 × ز لمدة 5 دقائق في RT إلى بيليه.
- إضافة 100 ميكرولتر من 5 وحدات / مل AF488 المسمى phalloidin المخفف في 1٪ BSA / PBS واحتضان لمدة 20 دقيقة في RT.
- إضافة 1 مل من برنامج تلفزيوني وتدور في 135 × ز لمدة 5 دقائق في RT لغسل. Resuspend بيليه الخلية في الحجم المطلوب لتحليل تدفق الخلايا.
- تقييم إزالة الجاذبية من خلايا NK التي تحفز FcγRIIIa باستخدام تلطيخ سطح CD107a
- احتضان الخلايا مع الأجسام المضادة ذات الأهمية على الجليد كما هو موضح في الخطوات 2.1-2.4. أثناء الحضانة، قم بإعداد 50 ميكرولتر من خليط الأجسام المضادة لكل عينة. إعداد الخليط في وسائط الخلية مع تركيز النهائي من 50 ميكروغرام / مل المضادة للإنسان κ سلسلة ضوء الأجسام المضادة و 1 ميكروغرام / مل الفلوروشروم المسمى CD107a.
- بعد احتضان الخلايا على الجليد، إضافة 1 مل من وسائل الإعلام الجليد الباردة. تدور في 135 × ز لمدة 5 دقائق في 4 درجة مئوية، ثم يغسل مرة أخرى مع 1 مل من الجليد الباردة وسائل الإعلام.
- أسبيرات supernatant بعد الغسيل الماضي، ثم إضافة 50 ميكرولتر من خليط سلسلة الضوء المضادة للإنسان κ واحتضان في 37 درجة مئوية لنقاط الوقت المطلوبة.
- في النقاط الزمنية المطلوبة، إضافة 1 مل من برنامج تلفزيوني وتدور في 135 × ز لمدة 5 دقائق في RT. أسبيرات supernatant وإضافة 100 ميكروغرام من 4٪ paraformaldehyde. احتضان في RT لمدة 10 دقائق.
- إضافة 1 مل من برنامج تلفزيوني وتدور في 135 × ز لمدة 5 دقائق في RT لغسل. Resuspend بيليه الخلية في الحجم المطلوب لتحليل تدفق الخلايا.
- تقييم إنتاج كيموكين/السيتوكين من خلايا NK المحفزة من FcγRIIIa
ملاحظة: يمكن استخدام طرق مختلفة و/أو مجموعات لتقييم إنتاج الكيموكين والسيتوكين.- بعد الوصول إلى نقطة زمنية للتحفيز (الخطوة 2.7)، ضع الأنبوب على الجليد على الفور وتدور في جهاز طرد مركزي مبرد عند 135 × غرام لمدة 5 دقائق عند 4 درجات مئوية.
- نقل supernatant في وعاء نظيف. تجميد supernatant حتى كيموكين أو تقييم السيتوكين باستخدام المقايسة المطلوبة.
ملاحظة: يمكن الآن غسل حبيبات الخلايا باستخدام برنامج تلفزيوني بارد الجليد ومعالجتها للإشارة والتعبير الجيني ودراسات إعادة ترتيب الهيكل الخلوي.
النتائج
من الضروري أن يكون نقاء الخلية NK مرتفعا لأن الجزء Fc من الأجسام المضادة يمكن أن يربط FcγRIIIa المعبر عنه على أنواع الخلايا الأخرى ، مثل الخلايا الأحادية. مع نقاء عالية، يمكن أن يعزى الملاحظات التي أدلى بها مباشرة إلى الأحداث التي تحركها FcγRIIIa في خلايا NK. هنا، كان خلايا NK أكبر من 90٪ نقاء على أساس CD56 وCD3 البقع (الشكل 1). وبالإضافة إلى ذلك، كانت نسبة البقاء >95 في المائة. يجب استخدام العناية عند استخدام العزلات ذات الجدوى الأقل. لضمان أن الأحداث كانت مدفوعة من قبل FcγRIIIa ، تم إجراء البقع الغربية للفوسفو-AKT (pAKT) ، phospho-PRAS40 (pPRAS40) ، وفوسفو-ERK1/2 (pERK1/2) ، والتي تم فيها تنشيط خلايا NK لمدة 1-5 دقائق. وكما هو مبين، لوحظ تراكم هذهالجزيئات (الشكل 2). وبالمثل، عبرت خلايا NK المنشطة عن MIP-1α و MIP-1β و IFN-γ و TNF-α، كما هو موضح في تحليل التعبير الجيني(الشكل 3).
بالإضافة إلى ذلك، لوحظ إعادة ترتيب الهيكل الخلوي في الخلايا المنشطة(الشكل 4). نسبة مئوية من خلايا NK حفز ل4 ساعة أعرب CD107a على سطح الخلية (الشكل 5). بالإضافة إلى ذلك، تم الكشف عن IFN-γ، TNF-α، MIP-1α، MIP-1β، و RANTES في الفائقة بعد 3 ساعة من التحفيز (الشكل 6). ومن المتوقع أن تستند هذه قراءات على الدراسات المنشورة كما تنشيط خلايا NK سيكون هذه البروتينات الفوسفورية، فضلا عن التعبير الجيني وإنتاج chemokines المذكورة والسيتوكينات8،9. في جميع التجارب, يجب أن تشمل ظروف التحفيز سلسلة ضوء المضادة للإنسان κ التحكم فقط والأجسام المضادة دون مكافحة الإنسان κ ضوء التحكم في الربط المتبادل. هذه الخلايا NK لا ينبغي أن تظهر أي إشارة فوسفو، degranulation، chemokine / إنتاج السيتوكين، أو chemokine / السيتوكين التعبير الجيني.
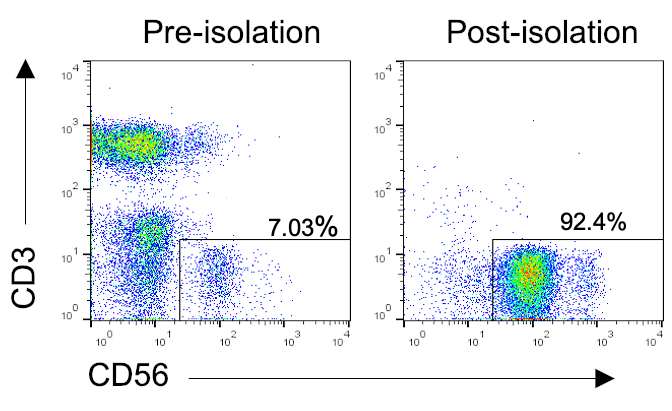
الشكل 1: ملامح التدفق التمثيلي لنقاء الخلية NK بعد العزلة عن PBMCs. تم عزل PBMCs من دم متبرع سليم ، يليه إثراء خلايا NK باستخدام طريقة اختيار سلبية لعزل خلايا NK البشرية(جدول المواد). كانت الخلايا ملطخة CD56 و CD3 قبل وبعد التخصيب لتحديد النقاء. رسم نقطة تمثيلية ل CD56 مقابل CD3 قبل وبعد العزل. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
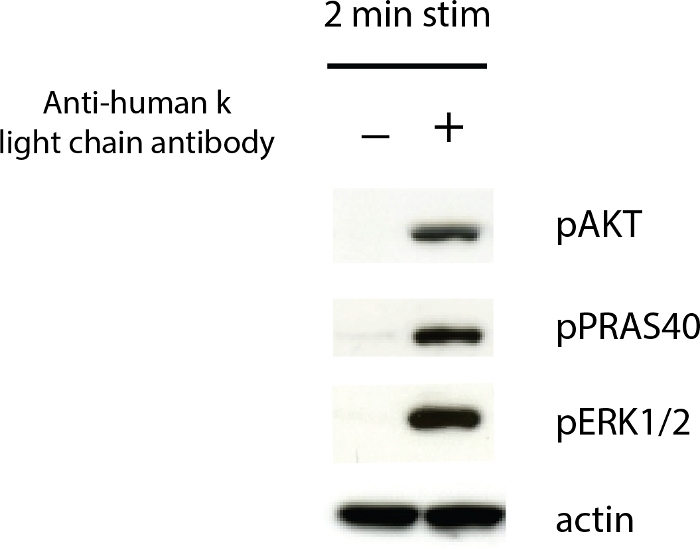
الشكل 2: تظهر خلايا NK المنشطة من FcγRIIIa جزيئات إشارات فوسفورية. تم تحفيز الخلايا مع ريتوكسيماب لمدة 2 دقيقة، وأدلى lysates الخلية وفقا للبروتوكول. تم فصل اللذالات على هلام 4٪-12٪، تليها نقل إلى غشاء PVDF. تم فحص الغشاء مع الأجسام المضادة ضد pAKT، pPRAS40، pERK1/2، وactin. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
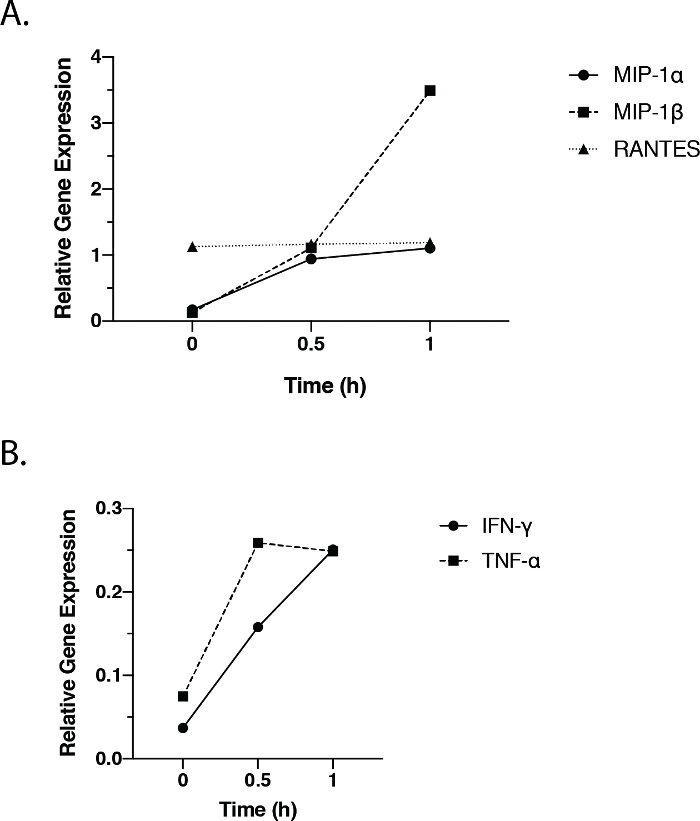
الشكل 3: تعبر خلايا NK المنشطة من FcγRIIIa عن جينات كيموكين وسيتوكين. تم تحفيز خلايا NK مع ريتوكسيماب لمدة 0 ساعة و0.5 ساعة و1 ساعة تم جمع مرنا وعكس نسخها، وخضعت لتحليل qPCR ل MIP-1α، MIP-1β، RANTES، IFN-γ، وTNF-α (جدول المواد). (أ)التعبير النسبي عن MIP-1α و MIP-1β و RANTES في كل نقطة زمنية. (ب)التعبير النسبي عن Γ IFN و TNF-α في كل نقطة زمنية. تم تطبيع القيم إلى جين أكتين. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
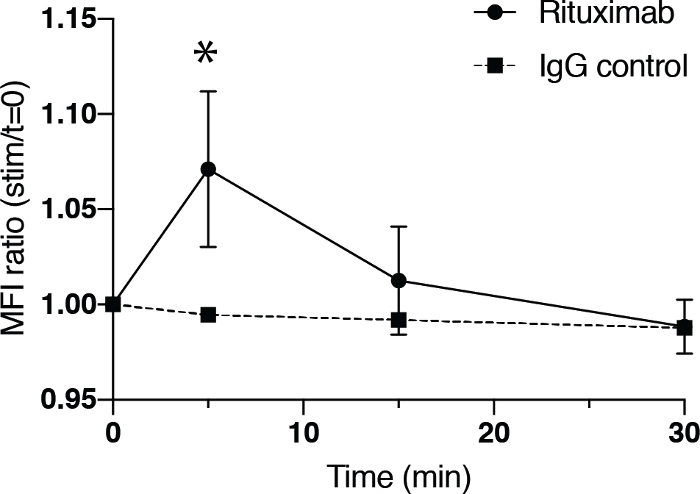
الشكل 4: تظهر خلايا NK المنشطة من FcγRIIIa إعادة ترتيب الهيكل الخلوي. تم تحفيز خلايا NK مع ريتوكسيماب لمدة 0 دقيقة و 5 دقائق و 15 دقيقة و 30 دقيقة ، تليها تقييم لإعادة ترتيب الهيكل الخلوي عن طريق تلطيخ الphalloidin وقياس التدفق الخلوي. نسبة MFI في نقطة زمنية تجريبية إلى MFI في الوقت 0 من خلايا NK حفز مع ريتوكسيماب (دائرة، خط صلب) أو الأجسام المضادة الثانوية وحدها (مربع، خط منقط). تمثل الأشرطة SD من أربع نسخ متماثلة. تمثل النجمة أهمية إحصائية استنادا إلى اختبار t للطالب غير المدفوع ذو الذيلين (*p < 0.05). يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
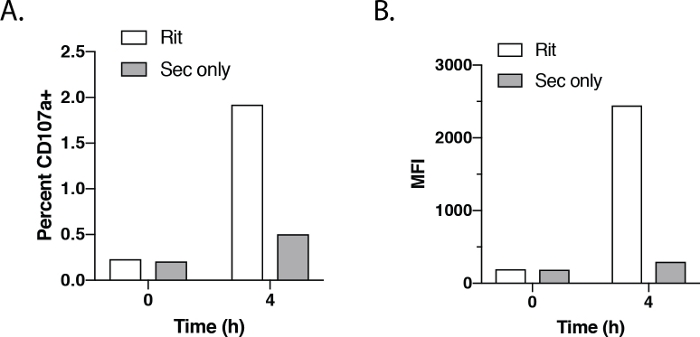
الشكل 5: FcγRIIIa تنشيط خلايا NK التعبير عن CD107a. تم تحفيز خلايا NK مع ريتوكسيماب لمدة 4 ساعة تليها تقييم للإزالة عن طريق CD107a وتدفق قياس الخلايا. (أ) النسبة المئوية للخلايا NK التعبير عن CD107a بعد التحفيز مع rituximab (أشرطة بيضاء) أو المضادة للإنسان κ سلسلة ضوء الأجسام المضادة (أشرطة رمادية) لمدة 0 ساعة و 4 ح. (ب) CD107a MFI من خلايا NK حفز مع ريتوكسيماب (أشرطة بيضاء) أو المضادة للإنسان κ سلسلة ضوء الأجسام المضادة (أشرطة رمادية) بعد 0 ساعة و 4 ساعة من العلاج. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
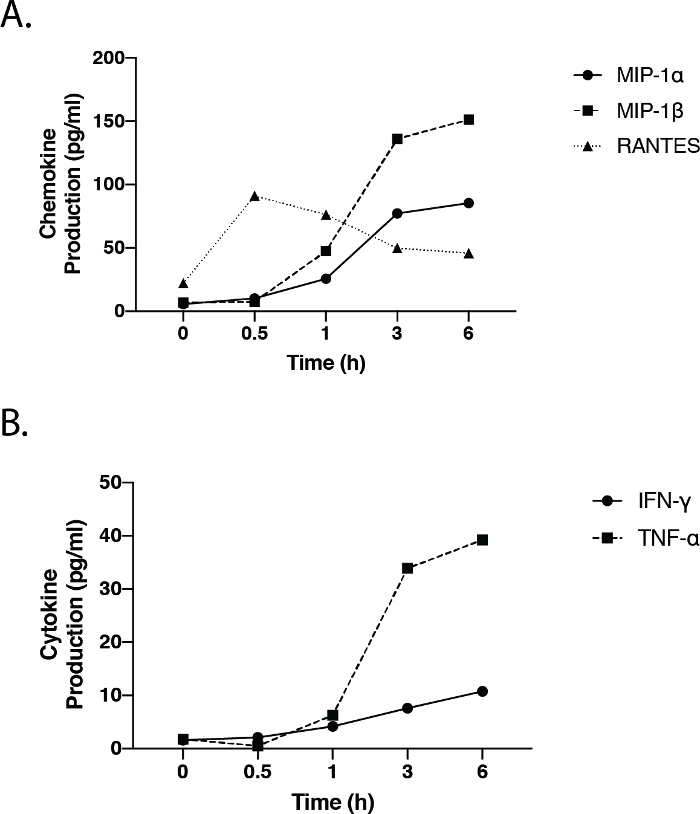
الشكل 6: خلايا NK تنشيط FcγRIIIa تفرز chemokines والسيتوكينات. تم تحفيز خلايا NK لمدة 0 و0.5 و1 و3 و6 ساعات مع ريتوكسيماب. تم جمع Supernatant لقياس إطلاق MIP-1α و MIP-1β و RANTES و IFN-γ و TNF-α بواسطة طريقة تقييم السيتوكين المستندة إلى التدفق والخرز(جدول المواد). (أ) إنتاج MIP-1α و MIP-1β و RANTES في كل نقطة زمنية. (ب) IFN-γ وإنتاج TNF-α في كل نقطة زمنية. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
المناقشة
يصف هذا البروتوكول أساليب لدراسة الأحداث التي تحركها FcγRIIIa في خلايا NK بوساطة الأجسام المضادة. هذه التقنيات تسمح بتقييم الآليات المحتملة للعمل من الأجسام المضادة العلاجية، والتي يقترح أن تكون ADCC1،2. على وجه التحديد، توفر هذه الطرق المرونة في دراسة مسارات الإشارات الجزيئية الأساسية والعمليات الخلوية المسؤولة عن ADCC. كما أنها تسمح بمراقبة وظائف التأثير الأخرى، مثل كيموكين وإنتاج السيتوكين. وبالإضافة إلى ذلك، تسمح هذه الأساليب بتحديد المؤشرات الحيوية والجزيئات المحتملة التي قد تستهدف تعديل مركز مكافحة التصحر.
أساس هذا البروتوكول هو التحفيز الاصطناعي لخلايا NK من خلال FcγRIIIa مع الأجسام المضادة في غياب الخلايا المستهدفة. الخلايا المستهدفة المرتبطة بالأجسام المضادة تعمل عادة على تعزيز الربط المتبادل لمستقبلات Fc لتشكيل منصة تدفع الإشارات وآثار المصب. بدلا من ذلك، يتم إنجاز الربط المتبادل باستخدام مضاد لسلسلة الضوء المضادة للإنسان κ في هذا المقايسة، متجاوزا الحاجة إلى الخلايا المستهدفة لتحفيز خلايا NK. بدون خلايا الهدف، يمكن أن تعزى النتائج والملاحظات مباشرة إلى خلايا NK، على افتراض أن عملية تنقية ناجحة.
الأهم من ذلك، وذلك باستخدام المضادة للإنسان κ الأجسام المضادة سلسلة ضوء لربط الأجسام المضادة لا تتداخل مع تقارب ملزمة من الجزء Fc لFcаRIIIa، وهو التفاعل الذي يملي قوة الاستجابة10،11،12،13. في الواقع، أظهرت الدراسات أن الأجسام المضادة afucosylated زيادة ADCC بسبب تقاربها المتزايد لFcаRIIIa10،11،12،13. وأظهرت الدراسات اللاحقة أن هذا التقارب المتزايد لا يتأثر ببديل الأجسام المضادة للإنسان المتسلسل الثانوي ويمكن استخدامه لدراسة أساس زيادة ADCC8. لضمان تحفيز الخلية NK من خلال الربط المتبادل للأجسام المضادة، ينبغي تضمين اثنين من الضوابط السلبية: 1) الأجسام المضادة العلاجية فقط دون المضادة للإنسانية الثانوية κ سلسلة ضوء الأجسام المضادة، و 2) الثانوية المضادة للإنسان κ سلسلة ضوء الأجسام المضادة فقط. وفي كلتا الحالتين، لا ينبغي توليد أي وظيفة للإشارة أو التأثير.
توفر هذه الطريقة أيضا مرونة لدراسة آثار الأجسام المضادة العلاجية على مثبطات الجزيئات الصغيرة. يمكن إضافة المثبط قبل الارتباط المتقاطع مع الجسم المضاد الثانوي بحيث يكون لدى المثبط الوقت لإشراك هدفه. ومع ذلك، ينبغي إجراء دراسات لتحديد الوقت الأمثل للمانع المعالجة المسبقة. وبالتالي ، فإن المثبط له تأثير أقصى على التحفيز. مع ذلك ، قد يختار الباحثون أيضا دراسة آثار المثبط بعد التحفيز. في هذه الحالة، يمكن إضافة المثبط بعد الربط المتبادل لدراسة كيفية تأثيره على الإشارات والعمليات التي يتم إنشاؤها بالفعل. معا، الطريقة الموصوفة هنا يوفر أقصى قدر من المرونة في دراسة الآثار combinatorial من مثبطات جزيء صغير مختلف مع الأجسام المضادة العلاجية.
كما ذكر أعلاه، يمكن إجراء مجموعة متنوعة من قراءات بعد التحفيز. يمكن إجراء النشاف الغربي لدراسة الإشارات باستخدام SDS-PAGE وأنظمة نقل الأغشية من مختلف البائعين. وبالمثل، يمكن أيضا تقييم التعبير الجيني باستخدام طرق استخراج الحمض النووي الريبي المختلفة، وأجهزة الكواشف النسخ العكسي، وأدوات التعبير الجيني. وأخيرا، يمكن أيضا تلطيخ البروتين داخل الخلايا أو خارج الخلية التي يمكن تحليل العينات باستخدام مقاييس تدفق مختلفة. للسيتوكين داخل الخلايا وCD107a تلطيخ (الخطوة 3.4, التي يمكن تقييمها في وقت واحد), وينبغي إضافة monensin و / أو brefeldin A لتحقيق أقصى قدر من الإشارات. لقد استخدمنا منصات مختلفة لكل هدف تجريبي وما زلنا نلاحظ نتائج مماثلة. لذلك ، يمكن استكمال الطريقة بأجهزة كاشفة ومنصات وأدوات مختلفة ، اعتمادا على الدراسة.
سيعتمد وقت الربط المتقاطع للتحفيز على هدف الدراسة. إذا رغبت في دراسات الإشارات، نموذجي وقت التحفيز عبر الوصلات بين 2 دقيقة و 10 دقيقة. pAKT، pPRAS40، وpERK1/2 تراكم قمم في 2 دقيقة ويختفي بعد 10 دقيقة8،9. للدراسات الوظيفية (أي تلك التي تنطوي على إنتاج chemokine / السيتوكين) ، يجب تحفيز الخلايا لمدة 30 دقيقة على الأقل ، اعتمادا على التحليل9. تحليل التعبير الجيني يتطلب أيضا عادة 30 دقيقة من التحفيز9. وينبغي توخي الحذر عند استخدام التعبير الجيني RANTES كمقروءة، كما RANTES mRNA الإنتاج مستقل عن التنشيط النسخي لأنه يتم تخزينها بالفعل في الخلايا للترجمة الفورية والإفراج عن البروتين عند التحفيز25. degranulation، في المقابل، يتطلب ما لا يقل عن 3 ساعة من التحفيز. على الرغم من هذه الملاحظات العامة، يجب على الباحثين إجراء دراسات حركية لتحديد وقت التحفيز الأمثل للجزيئات المعينة ذات الأهمية.
وبالمثل، يجب على الباحثين إعادة ترطيب الجسم المضاد المثير للاهتمام لتحديد التركيز الأمثل لأن الأجسام المضادة ذات الخصائص المختلفة ترتبط ب FcγRIIIa مع تقاربات مختلفة، حتى لو كانت من نفس النمط المتساوي. على سبيل المثال، ريتوكسيماب وتراستوزوماب كلاهما ايزوتيبي IgG1 ولكن trastuzumab يربط بقوة أكبر إلى تعدد الأشكال المزلج من FcγRIIIa من ريتوكسيماب26،27. هذا الاختلاف في التقارب قد يؤدي إلى اختلافات وظيفية، مثل التموج، كما لوحظ في الدراسات المنشورة8.
تحديد التركيز الأمثل مهم أيضا بسبب تقارب منخفض الجزء Fc من الأجسام المضادة لديه لFcаRIIIa. قد يؤدي هذا إلى غسل الأجسام المضادة لأن البروتوكول يتضمن خطوات الغسيل بعد ربط الجسم المضاد بمستقبلات Fc. وهذا قد يؤدي بعد ذلك إلى عدم وجود حساسية في المقايسات كما اقترح من قبل نسبة منخفضة من الخلايا الإيجابية CD107a بعد التحفيز (الشكل 5). ومع ذلك، فإن تحديد التركيز الأمثل ينبغي أن يوفر الثقة بأن النتائج لا تعزى إلى عدم وجود حساسية. بالإضافة إلى ذلك ، يتم تنشيط الخلايا بوضوح في المقايسات الكيميائية الحيوية والوظيفية التي تستخدم الخلية السائبة بدلا من قراءات الخلية الواحدة (الشكل 2، الشكل 3، الشكل 6).
البروتوكول محدود أيضا لأنه لا يحاكي تماما ما يحدث من الناحية الفسيولوجية. الأجسام المضادة للإنسانية الثانوية K المستخدمة هو تقليد الربط المتبادل الناتج عن مستضد الهدف المعبر عنه على الخلايا. هنا، يتم إضافة كمية مشبعة من الأجسام المضادة الثانوية لتوليد أقصى قدر من الاستجابة. ومع ذلك، فإن الخلايا المستهدفة المتميزة تعبر عن مستويات مختلفة من المستضد، مما سيؤثر على الروابط المتقاطعة والاستجابة. حاليا، لم يتم تحسين هذه المنصة لمحاكاة تأثيرات مستويات التعبير المستضد المختلفة.
وثمة عامل آخر ينبغي مراعاتها عند إجراء هذه التجارب هو التباين بين المانحين بسبب الخلفيات الوراثية المختلفة والتاريخ المناعي بين الأفراد. لذلك، يجب توخي الحذر عند مقارنة استجابات خلايا NK من مختلف الجهات المانحة عبر نفس المقايسات. وبالمثل، ينبغي التوصل إلى استنتاجات عامة فقط عند استخدام مختلف المانحين.
بالإجمال، الطريقة الموصوفة هي منصة تحفيز بسيطة ومرنة لدراسة الأجسام المضادة مدفوعة FcγRIIIa بوساطة الأحداث في خلايا NK. وقد استخدم لفهم أفضل لأساس زيادة ADCC وفعالية لوحظ مع الأجسام المضادة afucosylated8. كما استخدمت هذه الطريقة في دراسة تجمع بين الأجسام المضادة العلاجية ومثبطات جزيء صغير PI3K9. بالإضافة إلى ذلك، تم تحديد آلية لم تكن معروفة من قبل لإنتاج الكيموكين والسيتوكين التي تنظمها pS69. لذلك ، يمكن للدراسات المستقبلية التي تستخدم منصة الإشارات الاصطناعية هذه أن توضح آليات التنظيم لوظائف التأثير التي تحركها FcγRIIIa. كما أنه قد يحدد جزيئات جديدة مهمة لهذه الآليات وكذلك أدوار جديدة للجزيئات المعروفة.
الإفصاحات
جميع المؤلفين هم أو كانوا موظفين أو مستشارين للعلوم الحيوية iQ.
شكر وتقدير
يشكر المؤلفان جيمس لي وكريستوفر نغ على تعليقات وتحرير هذه المخطوطة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 16٪ بارافورمالدهايد | ثيرمو فيشر Scientific | 50-980-487 | |
| Alexa Fluor 488 phalloidin | Thermo Fisher Scientific | A12379 | |
| الأجسام المضادة HRP | تقنيات إشارات الخلية | 7076 | |
| أداة AutoMACS | Miltenyi | NK ؛ يمكن استخدام | |
| أداة عزل أخرىB-mercaptoethanol | Thermo Fisher Scientific | 21985023 | |
| مصل الأبقار الألبومين الجزئي V ، خالي من الأحماض الدهنية | Millipore Sigma | 10775835001 | |
| CD107a APC الجسم المضاد | Biolegend | 328620 | |
| Cytokine 30-Plex Human Panel | Thermo Fisher Scientific | LHC6003M | طريقة الكيموكين / السيتوكين ؛ يمكن استخدام طريقة أخرى لتحليل الكيموكين / السيتوكين |
| FBS | Hyclone | SH30071.01 | |
| الماعز المضاد للإنسان & كابا الأجسام المضادة للسلسلة الخفيفة | Millipore Sigma | AP502 | |
| وقف البروتياز ومثبط الفوسفاتيز كوكتيل | ثيرمو فيشر العلمي | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| عالية السعة cDNA طقم النسخ العكسي | Thermo Fisher Scientific | 4368814 | طريقة نسخ (كدنا) ؛ تستخدم وفقا لبروتوكول الشركة المصنعة |
| IFN-؟ بادئات | Thermo Fisher Scientific | Hs00989291_m1 | |
| أنبوب Leukosep (50 مل مخروطي الشكل مع حاجز مسامي) | Greiner | 227290 | |
| Lymphoprep (وسط تدرج الكثافة) | الخلية الجذعية | 7851 | |
| MIP-1؟ الاشعال | Thermo Fisher Scientific | Hs00234142_m1 | |
| MIP-1 & beta بادئات | Thermo Fisher Scientific | Hs99999148_m1 | |
| NK Cell Isolation | Miltenyi | 130-092-657 | NK Cell Isolate Kit ؛ يمكن استخدام مجموعة عزل أخرى |
| NuPAGE 4-12٪ Bis-Tris Protein | Gels Thermo Fisher Scientific | استخدام نظام فصل البروتين الآخر | |
| pAKT (S473) | تقنيات إشارات الخلايا | 4060 | |
| pERK1 / 2 تقنيات إشارات الخلية للأجسام المضادة | 4370 | ||
| pPRAS40 تقنيات إشارات الخلية للجسم المضاد | 13175 | ||
| غشاء PVDF | نيتروسليلوز | حراري فيشر العلمي | |
| بادئات RANTES | Thermo Fisher Scientific | Hs00982282_m1 | |
| RIPA العازلة | Millipore Sigma | R0278 | |
| RPMI ث / جلوتاماكس | ثيرمو فيشر العلمي | 61870 | |
| بيروفات الصوديوم | ثيرمو فيشر العلمي | 11360070 | |
| TNF-؟ بادئات | ثيرمو فيشر Hs00174128_m1 | ||
| تريتون X-100 | ثيرمو فيشر العلمي | 85111 | |
| TRIzol | ثيرمو فيشر العلمي | 15596018 | طريقة عزل الحمض النووي الريبي ؛ تستخدم وفقا لبروتوكول الشركة المصنعة |
| Xcell Blot II Transfer | Module Thermo Fisher Scientific | استخدام نظام فصل بروتين | |
| آخر Xcell SureLock Protein Gel نظام غرفة الرحلان الكهربائي | Thermo Fisher Scientific | استخدام نظام فصل بروتين آخر | |
| بيتا ؛ الأكتين HRP الجسم المضاد | Abcam | ab6721 | |
| & beta ؛ -actin الاشعال | ثيرمو فيشر Hs00982282_m1 |
المراجع
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
إعادة الطباعة والأذونات
