تقدم هذه الدراسة طريقة لتحليل مورفولوجيا الميتوكوندريا بناء على التلوين المناعي وتحليل الصور في أنسجة دماغ الفأر في الموقع. كما يصف كيف يسمح هذا للمرء باكتشاف التغيرات في مورفولوجيا الميتوكوندريا الناجمة عن تراكم البروتين في نماذج مرض باركنسون.
مقالة منهجية
الفحص النسيجي لمورفولوجيا الميتوكوندريا في نموذج مرض باركنسون
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تلعب الميتوكوندريا دورا مركزيا في استقلاب الطاقة للخلايا ، ووظيفتها مهمة بشكل خاص للخلايا العصبية بسبب ارتفاع الطلب على الطاقة. لذلك ، فإن ضعف الميتوكوندريا هو السمة المميزة المرضية لمختلف الاضطرابات العصبية ، بما في ذلك مرض باركنسون. شكل وتنظيم شبكة الميتوكوندريا من البلاستيك للغاية ، مما يسمح للخلية بالاستجابة للإشارات والاحتياجات البيئية ، كما يرتبط هيكل الميتوكوندريا ارتباطا وثيقا بصحتها. هنا ، نقدم بروتوكولا لدراسة مورفولوجيا الميتوكوندريا في الموقع بناء على التلوين المناعي لبروتين الميتوكوندريا VDAC1 وتحليل الصور اللاحق. يمكن أن تكون هذه الأداة مفيدة بشكل خاص لدراسة الاضطرابات التنكسية العصبية لأنها يمكن أن تكتشف الاختلافات الدقيقة في عدد الميتوكوندريا والشكل الناجم عن مجاميع α-synuclein ، وهو بروتين عرضة للتجميع يشارك بشكل كبير في أمراض مرض باركنسون. تسمح هذه الطريقة للمرء بالإبلاغ عن أن الخلايا العصبية الدوبامينية للمادة السوداء pars compacta التي تؤوي آفات pS129 تظهر تجزئة الميتوكوندريا (كما هو مقترح من خلال انخفاض نسبة العرض إلى الارتفاع ، AR) مقارنة بالخلايا العصبية المجاورة السليمة في نموذج باركنسون للحقن الليفي داخل الجمجمة المشكل مسبقا.
المقدمة
الجهاز العصبي المركزي لديه طلب مكثف على ATP: تستخدم الخلايا العصبية ATP لدعم التدرجات الأيونية ، وتخليق الناقل العصبي ، وتعبئة الحويصلة المشبكية ، وإطلاقها ، وإعادة تدويرها ، ولتمكين ترجمة البروتين المحلي وتدهوره. يتم إنتاج أكثر من 95٪ من ATP الذي يستخدمه الدماغ بواسطة الميتوكوندريا1. لذلك ، ليس من المستغرب أن يكون خلل الميتوكوندريا ضارا بشكل خاص بالخلايا العصبية. في الواقع ، تلعب ضعف وظيفة الميتوكوندريا دورا مهما في العديد من الأمراض العصبية ، بما في ذلك الحالات التنكسية العصبية ، مثل مرض باركنسون (PD) ومرض الزهايمر (AD) 2,3.
ترتبط الجينات المتعددة بشكل لا لبس فيه ببروتينات ترميز PD ذات الصلة بوظيفة الميتوكوندريا والتوازن ، مثل Parkin4،5،6 و PTEN الناجم عن الكيناز 1 (PINK1) 7,8 و DJ-19. دليل آخر على دور لخلل الميتوكوندريا في مرض باركنسون هو أن العلاجات بمثبطات المركب الأول من سلسلة نقل إلكترون الميتوكوندريا (مثل روتينون و MPTP) تلخص عدة جوانب من PD في المختبر وفي الجسمالحي 10. ومع ذلك ، من المهم الإشارة إلى أن العديد من العمليات المرضية قد تؤدي إلى فقدان الخلايا العصبية في مرض باركنسون ، جنبا إلى جنب مع عجز الميتوكوندريا: الإجهاد التأكسدي ، وتوازن الكالسيوم المتغير ، وفشل يوبيكويتين - بروتيازوم وأنظمة الالتهام الذاتي - الليزوزومية ، وتجميع البروتين هي من بين الأكثر دراسة (تمت مراجعتها في11،12،13 و).
الميتوكوندريا غير متجانسة الشكل: بالإضافة إلى الوحدات الفردية ، توجد عادة كشبكات شبكية وأنبوبية ممتدة. الهيكل والموقع الخلوي للميتوكوندريا أمران حاسمان لوظيفتها14 ؛ في الواقع ، شبكات الميتوكوندريا ديناميكية للغاية ، وتخضع لعمليات متكررة من الانشطار والاندماج والميتوفاجي من أجل تلبية احتياجات الخلايا والاستجابة للإشارات البيئية15,16. بالإضافة إلى ذلك ، يرتبط مورفولوجيا الميتوكوندريا ارتباطا وثيقا بحالتهم الصحية. على سبيل المثال ، في الضمور البصري البشري ، تؤدي الطفرات الجينية التي تقلل من نشاط الميتوكوندريا إلى الميتوكوندريا غير الطبيعية والنحيلة والمفرطةالانصهار 17. من ناحية أخرى ، تقدم مجموعة متنوعة من الأمراض البشرية مورفولوجيا ميتوكوندريا شاذة ، بما في ذلك تجزئة الميتوكوندريا أو الانصهار المفرط للميتوكوندريا ، والتي لها آثار ضارة على وظيفة الميتوكوندريا (تمت مراجعتها في18). في سياق مرض باركنسون ، أظهرنا نحن وآخرون سابقا أن شكل الميتوكوندريا غير الطبيعي يرتبط بالخلل الوظيفي استجابة لمجاميع α-synuclein19. في حين تمت دراسة مورفولوجيا الميتوكوندريا على نطاق واسع في المختبر في سياق مرض باركنسون وأمراض أخرى20،21،22 ، لا توجد بروتوكولات لتقييم مورفولوجيا الميتوكوندريا من أقسام الجسم الحي. هذا يجعل الدراسة في الجسم الحي للميتوكوندريا في سياق أمراض مثل PD تعتمد بشكل كبير على المعدلة وراثيا23 أو تقييم مستخلصات الدماغ المتوسط التي لا يمكن أن توفر الدقة الخلوية.
هنا ، يتم تقديم بروتوكول لدراسة مورفولوجيا الميتوكوندريا في الموقع كمؤشر على حالتها الوظيفية وصحتها ، بناء على التلوين المناعي لبروتين الميتوكوندريا VDAC124 متبوعا بتحليل الصور في أقسام الأنسجة المضمنة بالبارافين. نعرض أيضا نتائج هذا البروتوكول في نماذج PD في المختبر وفي الجسم الحي : خلايا الورم الأرومي العصبي التي تفرط في التعبير عن SNCA (Synuclein Alpha) وأنسجة المخ من الفئران المعرضة للحقن داخل الجمجمة من الألياف α-synuclein مسبقة التكوين (PFFs). سمح لنا التلوين المناعي المشترك مع جسم مضاد ضد α-synuclein (في الخلايا) أو phosphoSer129- α-synuclein pS129 (في أدمغة الفئران) بتحديد الخلايا ذات أمراض البروتين الكلي (فرط التعبير عن α-synuclein و α-synuclein fibrils ، على التوالي) في العينات ، بينما كانت الخلايا السلبية بمثابة عنصر تحكم غير مرضي داخل نفس العينات. من خلال هذا التحليل والبيانات الموصوفة هنا ، لوحظ انخفاض نسبة العرض إلى الارتفاع ، مما يشير إلى تجزئة الميتوكوندريا في الخلايا التي تفرط في التعبير عن SNCA أو تقديم آفات pS129.
البروتوكول
تم تنفيذ جميع الإجراءات الموضحة في هذا القسم وفقا للإطار الأخلاقي المقدم من جامعة الباسك المرجعية M20/2022/212 وحكومة إقليم الباسك والحكومة الإسبانية والاتحاد الأوروبي.
1. تحليل مورفولوجيا الميتوكوندريا في خلايا SNCA المفرطة في التعبير عن SH-SY5Y
ملاحظة: هنا ، يتم تقديم وصف موجز لتوليد المواد في المختبر للدراسة ، والتي ستكون بمثابة مقارنة للنتائج التي تم الحصول عليها في الموقع . يوصى بإجراء هذا النوع من التحليل قبل إطلاق تجربة في الجسم الحي لمورفولوجيا الميتوكوندريا ، حيث سيضمن وجود جميع إعدادات التصوير والتحليل المناسبة.
- لزيادة التعلق الخلوي وتسهيل الالتصاق الخلوي على ألواح 96 بئر بصرية مسطحة ، أضف 25 ميكرولتر / بئر من مصفوفة الطلاء 1: 1000 في DMEM F12 عن طريق السحب (انظر جدول المواد). احتضان لوحات لمدة 1 ساعة في 37 درجة مئوية و 5 ٪ CO2.
- عد SH-SY5Y باستخدام غرفة نيوباور. قم بإزالة مصفوفة الطلاء عن طريق السحب ، وقم بزرع 10.000 خلية / بئر على اللوحة المطلية ذات 96 بئرا في 50 ميكرولتر / بئر من DMEM F-12 المكمل ب 10٪ FBS و 2 mM الجلوتامين والبنسلين / الستربتومايسين (انظر جدول المواد).
- احتضان الخلايا عند 37 درجة مئوية و 5٪ CO2لمدة 24 ساعة.
- تحضير خليط من 250 نانوغرام من pcDNA3.1 يحمل SNCA من النوع البري البشري ، و 0.250 ميكرولتر من كاشف النقل ، و 0.250 لتر من مساعد النقل ، ووسط نقل يصل إلى 50 ميكرولتر لكل بئر (انظر جدول المواد). قم بإعداد حل رئيسي مع الأخذ في الاعتبار العدد الإجمالي للآبار في التجربة.
- قم بإزالة وسط الاستزراع عن طريق السحب اليدوي وأضف 50 ميكرولتر / بئر من المحلول المحضر في الخطوة 1.4 عن طريق السحب. احتضان في 37 درجة مئوية ، 5 ٪ CO2.
- h بعد النقل ، قم بإزالة وسط النقل عن طريق السحب وإضافة 25 ميكرولتر / بئر من 4٪ بارافورمالدهايد (PFA) في PBS.
تنبيه: بارافورمالدهيد هو مثبت سام. استخدم معدات الوقاية الشخصية المناسبة. - احتضان لمدة 5 دقائق في درجة حرارة الغرفة (R.T). قم بإزالة محلول التثبيت عن طريق السحب والغسيل مرة واحدة بإضافة 50 ميكرولتر / بئر من PBS. إزالة PBS عن طريق ماصة.
- ماصة 25 ميكرولتر / بئر من TBS مع 0.05٪ توين (TBS-T) و 10٪ مصل حمار عادي (NDS ، انظر جدول المواد). احتضان لمدة 1 ساعة في R.T. لمنع أي إشارة غير محددة.
- قم بإعداد محلول من الجسم المضاد للأرانب المضاد α-synuclein MJFR1 1: 1000 مع الجسم المضاد للفأر TOMM20 1: 100 في TBS-T (انظر جدول المواد) وفقا لعدد الآبار المراد تحليلها.
- قم بإزالة محلول الحجب من الخطوة 1.8 عن طريق سحب الإصبع وإضافة 25 ميكرولتر / بئر من خليط الأجسام المضادة الأولية المحضرة في الخطوة 1.9. احتضان بين عشية وضحاها في 4 درجة مئوية.
- قم بإزالة محلول الجسم المضاد الأساسي واغسله ثلاث مرات عن طريق إضافة وإزالة 50 ميكرولتر / بئر من TBS-T عن طريق الماصة.
- قم بإعداد محلول من الأجسام المضادة الثانوية الخضراء المضادة للفأر 1: 1000 مع الجسم المضاد الثانوي الأحمر المضاد للأرانب 1: 1000 في TBS-T (انظر جدول المواد) وفقا لعدد الآبار المراد تحليلها.
- بعد استنشاق PBS من آخر غسلة موصوفة في الخطوة 1.11 ، أضف 25 ميكرولتر / بئر من خليط الأجسام المضادة الثانوي باستخدام ماصة واحتضان اللوحة لمدة 1 ساعة في R.T.
- قم بإزالة محلول الجسم المضاد الثانوي عن طريق السحب وإضافة 25 ميكرولتر / بئر من 2 جم / مل DAPI في TBS-T. احتضان الطبق لمدة 5 دقائق في R.T.
- قم بإزالة محلول DAPI باستخدام ماصة واغسلها ثلاث مرات عن طريق إضافة وإزالة 50 ميكرولتر / بئر من TBS-T باستخدام ماصة.
- ماصة 80 ميكرولتر / بئر من PBS مع 0.02٪ أزيد الصوديوم وتخزين اللوحة في 4 درجات مئوية.
تنبيه: أزيد الصوديوم سام. استخدم معدات الوقاية الشخصية المناسبة. - التقط الصور باستخدام مجهر مضان آلي عالي المحتوى أو نظام تصوير متحد البؤر مكافئ مزود بهدف 60x (انظر جدول المواد).
- قم بإجراء تحليل لإشارة TOMM20 للخلايا المفردة باستخدام فيجي باتباع الخطوات 3.15-3.21. تجنب أي خلايا تخضع لموت الخلايا المبرمج أو النخر أو الانقسام.
ملاحظة: للقيام بذلك ، نستبعد من التحليل الخلايا التي تظهر تلك السمات المورفولوجية لموت الخلايا المبرمج أو النخر أو الانقسام الفتيلي المرئي تحت المجهر ، مثل انكماش الخلايا ، ونفخ الغشاء ، وانفصال الخلايا ، والتكثيف النووي ، وتجزئة الحمض النووي ، والكروماتين النووي المكثف المنظم في خيوط سميكة محاذاة في مستوى واحد.
2. توليد حقن PFFs و PFF داخل الجمجمة في الفئران
ملاحظة: يتم عرض توليد مواد الحقن وعملية الحقن داخل الجمجمة هنا. هذا البروتوكول مقتبس من Luk et al.25.
- للحصول على PFFs ، ضع أنبوبا / قارورة تحتوي على 0.5 مل من α-Syn (5 ملغ / مل ؛ الببتيد ، انظر جدول المواد) على شاكر عند 37 درجة مئوية و 250 دورة في الدقيقة لمدة 7 أيام للحث على تجميع α-synuclein.
- قم بتحويل α-synuclein المجمع بسعة 20٪ وواجب دورة 0.25 حتى يتم تحقيق التجزئة المثلى وملاحظتها عن طريق التلوين السلبي للعينات باستخدام المجهر الإلكتروني النافذ.
- لتحضير ذكور وإناث الفئران C57Bl/6 (3 أشهر) لحقن PFF المخططة، يتم تطبيق ميلوكسيكام/ميتاكام (5 ملغ/كغ) في محلول ملحي تحت الجلد. يتم أيضا تطبيق 1 مل من المحلول الملحي المعقم عن طريق حقنتين تحت الجلد سعة 0.5 مل لكل. هذه العلاجات تمنع الجفاف والالتهابات والألم.
- تحفيز التخدير مع 4٪ إيزوفلوران و 0.7 لتر / دقيقة O2 في غرفة الحث. تحقق من عمق التخدير بسبب عدم استجابة الدواسة.
- حلق الجزء العلوي من رأس الماوس وأدخل برفق في إطار جهاز التجسيم على حصيرة حرارية.
- الحفاظ على مستوى التخدير من خلال توفير تخدير استنشاق (1٪ -2٪ إيزوفلوران في 0.7 لتر / دقيقة O2) من خلال قناع الوجه أثناء عملية الحقن بأكملها.
- ضع على الإطار التجسيمي. تطهير منطقة التشغيل بثلاث جولات من فرك الكلورهيكسيدين بالتناوب و 70٪ إيثانول. ضع ماركاين / بوبيفاكايين محليا (حوالي 100 ميكرولتر) كسلل تحت الجلد بنسبة 0.25٪.
- قم بإجراء شق 0.5 سم من الجلد لكشف الجمجمة وحفر ثقب قطره 1 مم في الجمجمة لكشف سطح الدماغ ، في الإحداثيات التالية من Bregma: - 0.5 مم أمامي خلفي ، +/- 2.5 مم متوسط الجانب.
- حقن 1.5 لتر من PFFs التي تم الحصول عليها في الخطوة 2.2 عن طريق التسليم التجسيمي إلى الإحداثيات المشار إليها في الخطوة 2.8 من Bregma و -2.7 مم الظهرية البطنية (من الدماغ العلوي) بمعدل تدفق 100 nl / min مع حقنة هاملتون 32-G. سحب المحقنة بعد 5 دقائق من الحقن.
- خياطة (الحجم: 4-0 ، 45 سم ، انظر جدول المواد) الجرح بثلاث إلى خمس غرز حسب الحاجة ، وربط كل منها ب 2 عقدة مزدوجة ثم عقدة واحدة. توقف عن استنشاق التخدير وأزل الماوس من الإطار.
- اترك الماوس للتعافي في قفص استرداد مناسب قبل إعادته إلى قفصه المنزلي.
- خلال الأسبوع التالي ، قم بإجراء فحوصات يومية بعد العملية الجراحية. يجب إعطاء أي ألم أو ضيق أو انزعاج لأي جرعة من ميلوكسيكام / ميتاكام كما هو موضح في الخطوة 2.3 كل 24 ساعة.
- بعد ثلاثة أشهر ، حقن 300 ميكرولتر من 200 ملغ / مل بنتوباربيتال الصوديوم في محلول ملحي عن طريق الحقن داخل الصفاق. بمجرد فقدان منعكس الألم ، قم بعمل شق (2-3 سم) على الصدر وارفع الأضلاع لكشف القلب.
- يتخلل عبر القلب مع 10 مل من PBS و 35 مل من 4٪ بارافورمالدهايد في PBS واحدا تلو الآخر عند 5 مل / دقيقة باستخدام حقنة 50 مل متصلة بإبرة فراشة 23 جرام.
- قم بإزالة الدماغ و postfix في 4٪ PFA لمدة 24 ساعة إضافية عند 4 درجات مئوية. قم بتخزينه في 70٪ إيثانول عند 4 درجات مئوية بعد معالجة PFA.
- ضع الدماغ في صناديق تضمين بلاستيكية مناسبة (انظر جدول المواد) واحتضان 95٪ إيثانول لمدة 1 ساعة في R.T. كرر الخطوة في الإيثانول الطازج بنسبة 95٪ واحتضان مرة أخرى لمدة 1 ساعة.
- نقل العقول إلى 100٪ إيثانول لمدة 1 ساعة في R.T. كرر الخطوة في الإيثانول الطازج 100٪ واحتضان مرة أخرى لمدة 1 ساعة.
- نقل الأدمغة إلى زيلين أو زيلين بديل لمدة 1 ساعة في R.T. كرر في محلول جديد واحتضان مرة أخرى لمدة 1 ساعة.
- قم بإزالة بديل الزيلين أو الزيلين واحتضان العينة في البارافين الدافئ لمدة 1 ساعة. استبدال البارافين واحتضان لمدة ساعة إضافية.
- قم بتركيب الدماغ على صناديق التضمين بالبارافين الدافئ واتركه يجف طوال الليل. قم بإعداد أقسام 5 ميكرومتر باستخدام ميكروتوم (انظر جدول المواد) وقم بتركيبها على شرائح زجاجية.
3. تحليل مورفولوجيا الميتوكوندريا بواسطة الكيمياء الهيستولوجية المناعية على شرائح الدماغ المضمنة بالبارافين من الفئران المحقونة ب PFF
- قم بإزالة الشمع من الشرائح عن طريق غمسها في بديل الزيلين عشر مرات. احتضان الشرائح لمدة 2 دقيقة في بديل الزيلين. تراجع مرة أخرى عشر مرات في بديل الزيلين.
ملاحظة: هذه الخطوة ضرورية لإزالة البارافين وتمكين إعادة إماهة العينات. - الإماهة: كرر الإجراء الموضح في الخطوة 3.1 مع الحلول التالية: 100٪ EtOH ، 95٪ EtOH ، 70٪ EtOH ، ومرتين مع ddH2O بالترتيب.
- قم بإجراء استرجاع المستضد والتلوين المناعي باتباع الخطوات أدناه.
- ابدأ بنقل العينات إلى حاوية قابلة للميكروويف باستخدام ddH2O.
- قم بإحماء 100x citrate buffer pH 6 (انظر جدول المواد) المخزنة عند 4 درجات مئوية (قد تكون المنظفات قد ترسبت) وقم بإعداد 350 مل من محلول سترات 1x الطازج. ثم صب المخزن المؤقت سيترات في وعاء بلاستيكي مناسب مع غطاء.
- ضع الشرائح في حاوية المخزن المؤقت للسيترات (حرج: تحقق من أن الشرائح أسفل مستوى المخزن المؤقت) وضع الغطاء.
تنبيه: تأكد من عدم إغلاق الغطاء تماما ، وإلا فقد تنفجر الحاوية في الميكروويف. - الميكروويف عند 700 واط: 4 دقائق + 5 دقائق راحة ، 1.5 دقيقة + 5 دقائق راحة. قم بتعبئة المخزن المؤقت للسيترات والميكروويف مرة أخرى 1.5 دقيقة + 5 دقائق راحة ، 1.5 دقيقة + 5 دقائق راحة ، 1.5 دقيقة + 5 دقائق راحة.
- تبرد العينات في محلول سيترات على الثلج لمدة 20 دقيقة. اغسل العينة باستخدام ddH2O.
ملاحظة: قد يختلف استرجاع المستضد وفقا لمتطلبات الأجسام المضادة المحددة.
- جفف شرائح العينة بمنشفة ورقية دون لمس المنديل. ارسم مستطيلات بقلم عنق الرحم (انظر جدول المواد) حول قطع الأنسجة.
- انقل جميع الشرائح إلى صندوق تلطيخ مناعي منزلق واغسلها عدة مرات برفق باستخدام TBS + 0.05٪ TWEEN (TBS-T). تحقق من بقاء قطرات TBS-T داخل مستطيلات pap-pen.
- قم بإزالة TBS-T من العينات عن طريق النقر على منشفة ورقية. أضف 50 ميكرولتر من محلول مانع (10٪ NDS في TBS-T) في كل مستطيل (دون لمس الأنسجة) واحتضانها لمدة 1 ساعة في RT.
ملاحظة: قد تختلف الأحجام وفقا لحجم الأنسجة. حاول التأكد من: (1) أن المنطقة التي كتبها عنق الرحم متشابهة عبر العينات ، و (2) المنطقة مغطاة بالكامل بحجم المخزن المؤقت المختار. - قم بإزالة محلول الحجب من العينات عن طريق النقر على منشفة ورقية. ماصة بلطف 50 ميكرولتر / مستطيل من خليط الأجسام المضادة الأولية التالية في TBS-T: هيدروكسيلاز مضاد التيروزين 1: 250 مع مضاد VDAC1 1: 100 ومضاد pSer129 α-synuclein EP1536Y 1: 2000 (انظر جدول المواد).
- احتضان بين عشية وضحاها في 4 درجة مئوية.
- اغسل عن طريق سحب TBS-T على الشرائح وقم بإزالته بالنقر على منشفة ورقية. كرر ثلاث مرات.
- أضف عن طريق سحب 50 ميكرولتر / مستطيل من خليط الأجسام المضادة الثانوية: الأخضر الثانوي المضاد للدجاج ، والأحمر الثانوي المضاد للفأر ، والأحمر الثانوي البعيد المضاد للأرانب 1: 1000 في TBS-T (انظر جدول المواد). احتضان في 37 درجة مئوية لمدة 1 ساعة في الظلام.
- اغسل ثلاث مرات باستخدام TBS-T كما هو موضح في الخطوة 3.13.
- احتضان مع DAPI 2 ميكروغرام / مل في TBS-T لمدة 1 دقيقة. قم بإزالة حل DAPI من خلال النقر على منشفة ورقية. اغسل ثلاث مرات باستخدام TBS-T كما هو موضح في الخطوة 3.13.
- قم بتركيب غطاء زجاجي على العينات باستخدام 2 قطرات / شريحة من كاشف التركيب (انظر جدول المواد). اضغط على غطاء الغطاء برفق للتخلص من الفقاعات واترك العينات تجف لمدة 1 ساعة في R.T. بعد ذلك ، قم بتخزينها في درجة حرارة 4 درجات مئوية في الظلام.
- صور ما لا يقل عن 50 خلية في مجالات مختلفة باستخدام نظام تصوير مضان بإضاءة منظمة مزود بتقنية 60x Oil Objective أو Confocal .
- قم بإجراء تحليل لإشارة VDAC1 للخلايا المفردة باستخدام فيجي كما هو موضح في الخطوات التالية.
- أولا ، حدد منطقة الاهتمام (ROI) واعزلها عن طريق رسم محيط حول الخلية الموجبة أو السالبة (حسب الاقتضاء) واستخدام وظيفة "Crop". من أجل تجنب التحيز في اختيار عائد الاستثمار ، اختره من خلال النظر في إشارة مضان لعلامة لا علاقة لها بالتحليل (أي ليست علامة الميتوكوندريا).
- اختياري: إذا كانت الصورة منقطة بشكل مفرط ، فاستخدم الوظيفة "السلس" للحصول على تعريف حافة أعلى.
ملاحظة: إذا تم تطبيق الوظيفة السلسة على صورة ، فيرجى تطبيقها على جميع الصور اللاحقة. - اختياري: استخدم وظيفة "Convolve" (وضع Kernel ، في > مرشحات العملية) لتقليل الخلفية.
ملاحظة: هذا اختياري وعادة ما يكون غير ضروري عند استخدام مقاطع 5 أمتار بسبب الطبيعة الرقيقة للأقسام. - قم بتنشيط واصفات الأشكال والحد من خيارات العتبة في وظيفة "تعيين القياس" (تأكد من تنشيطها من خلال التحليل).
- في قائمة "ضبط" ، حدد وظيفة العتبة واضبط مستوى العتبة. يجب الحفاظ على إعدادات العتبة لجميع خلايا نفس العينة.
- حاول ضمان التصور الكافي لشبكة الميتوكوندريا ، كما هو موضح في الصور التمثيلية لهذه المقالة ، مع تجاهل وحدات بكسل الخلفية.
- استخدم أداة تحليل الجسيمات في علامة التبويب تحليل. اضبط حجما مناسبا لالتقاط الميتوكوندريا. في هذا المثال، الحجم: 25-Infinity، تنشيط: وحدات بكسل، وتحديد: إظهار: تم استخدام أوامر الأقنعة لتصور النتيجة. ستقوم فيجي بحساب وعرض الأعداد ونسبة العرض إلى الارتفاع (AR) ومعلمات الشكل الأخرى في لوحة جديدة.
- إجراء تحليل إحصائي للبيانات حسب الاقتضاء. في هذه التجربة ، تم استخدام اختبار t لتحليل الفرق في متوسط نسبة العرض إلى الارتفاع (AR) والأعداد المحسوبة بواسطة فيجي بين المجموعات التجريبية بعد اختبار الحالة الطبيعية باستخدام اختبارات D'Agostino و Pearson الطبيعية.
النتائج
من أجل ضمان وجود ظروف التصوير والتحليل المناسبة للتقييم في الموقع لمورفولوجيا الميتوكوندريا في الأنسجة ، يوصى باستكشاف مورفولوجيا الميتوكوندريا في المختبر استجابة لمعدل معروف لمورفولوجيا الميتوكوندريا (القسم 1). على سبيل المثال ، تم التعبير عن SNCA وراثيا في خلايا SH-SY5Y لإحداث تغييرات في مورفولوجيا الميتوكوندريا كما هو موضح سابقا26. الإهانات الأخرى التي يمكن استخدامها كعنصر تحكم لتفاقم مورفولوجيا الميتوكوندريا هي التجويع أو استخدام مثبطات نشاط الميتوكوندريا مثل MPP +. تم نقل الخلايا وتلطيخها من أجل α-synuclein (AS) لفصل خلايا SNCA + (AS+) و SNCA- (AS-). كما تم تلطيخها ب TOMM2027 لتصور شبكة خلايا الميتوكوندريا. لجعل هذا التحليل مشابها قدر الإمكان لقسم الأنسجة 5 ميكرومتر ، تم تحليل مستوى متحد البؤر بدلا من الحد الأقصى لإسقاط مستويات متعددة. كشف التحليل المورفولوجي لمستوى متحد البؤر واحد من TOMM20 أن كلا من العدد الإجمالي للميتوكوندريا ونسبة العرض إلى الارتفاع أو AR (الذي يرتبط باستطالة العضية) قد انخفض استجابة للتعبير المفرط ل SNCA (الشكل 1).
تم إجراء تلطيخ مناعي لبروتين الميتوكوندريا VDAC1 في أقسام دماغ الفأر المضمنة في البارافين 5 ميكرومتر من المحقونة ب PFFs كما هو موضح في قسم البروتوكول أعلاه. تم الكشف عن الخلايا العصبية الدوبامينية للمادة السوداء بارس كومباكتا (SNc) ، والتي تخضع للانحطاط في مرض باركنسون ، من خلال التلوين المناعي المشترك مع هيدروكسيلاز مضاد التيروزين (TH) وتم فصلها إقليميا عن منطقة tegmental البطنية والمادة السوداء pars lateralis. من ناحية أخرى ، سمح لنا تلطيخ مضاد الفوسفوسSer129-α-synuclein (pS129) بتمييز الخلايا التي تحتوي على آفات pS129 عن الخلايا السليمة (pS129 + مقابل pS129-). تم التقاط صور SNc لثلاثة مختلفة ، وكشف تحليل الصور اللاحق لتلطيخ VDAC1 للخلايا العصبية الإيجابية TH عن انخفاض في كل من عدد عدد الميتوكوندريا ونسبة العرض إلى الارتفاع بين الخلايا العصبية التي تحمل آفات pS129 والخلايا العصبية التي تفتقر إليها (الشكل 2). تشير هذه النتائج إلى أن مورفولوجيا الميتوكوندريا للخلايا العصبية التي تؤوي آفات pS129 ضعيفة مقارنة بالخلايا التي تفتقر إلى آفات pS129.
في حين أن هذه التجربة بالذات تظهر انخفاضا في AR ، مما يسلط الضوء على انخفاض في استطالة الميتوكوندريا مع انخفاض في الأعداد العالمية ، مما يشير إلى تدهور مورفولوجيا الميتوكوندريا ، يجب أن يعتمد تفسير البيانات على التجربة. على سبيل المثال ، يمكن أن يشير الانخفاض في AR والأعداد إلى انخفاض عالمي في محتوى الميتوكوندريا بالإضافة إلى التجزئة ، في حين أن الانخفاض في AR ولكن الزيادة في الأعداد العالمية قد يشير إلى النمط الظاهري لتجزئة الميتوكوندريا. لذلك ، من المهم تفسير البيانات في سياق كلا المقياسين.
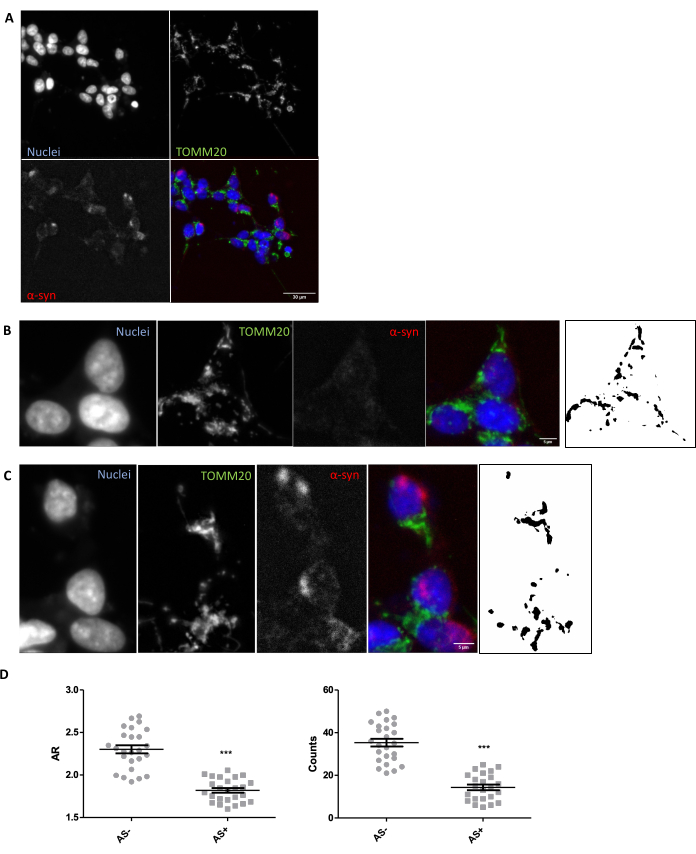
الشكل 1: مورفولوجيا الميتوكوندريا في نموذج SNCA المفرط في المختبر . تلطيخ المناعة المشترك ل TOMM20 (أخضر) ، α-سينوكلين (AS، أحمر) ، و DAPI (أزرق) على خلايا SNCA المفرطة في التعبير وعدم الإفراط في التعبير (AS+ و AS- ، على التوالي) (A). تفاصيل خلية AS- (B) وخلية AS+ (C). تمثل الصور بالأبيض والأسود في اللوحتين (B) و (C) أقنعة إشارة TOMM20 بعد تطبيق وظيفة فيجي الموضحة في قسم البروتوكول. يتيح هذا القناع القياس الكمي لشكل الهياكل الناتجة. تم تحديد عدد الميتوكوندريا وقيم نسبة العرض إلى الارتفاع (AR) لخلايا AS- و AS+ (N = 25 خلية لكل حالة) وتمثيلها كقيم فردية بالإضافة إلى متوسط ± SEM ؛ ** القيمة الاحتمالية < 0.05 t اختبار (D). تم تقييم الحالة الطبيعية من خلال اختبارات D'Agostino و Pearson الطبيعية. قضبان المقياس: A ، 30 ميكرومتر ؛ ب ، ج ، 5 ميكرومتر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
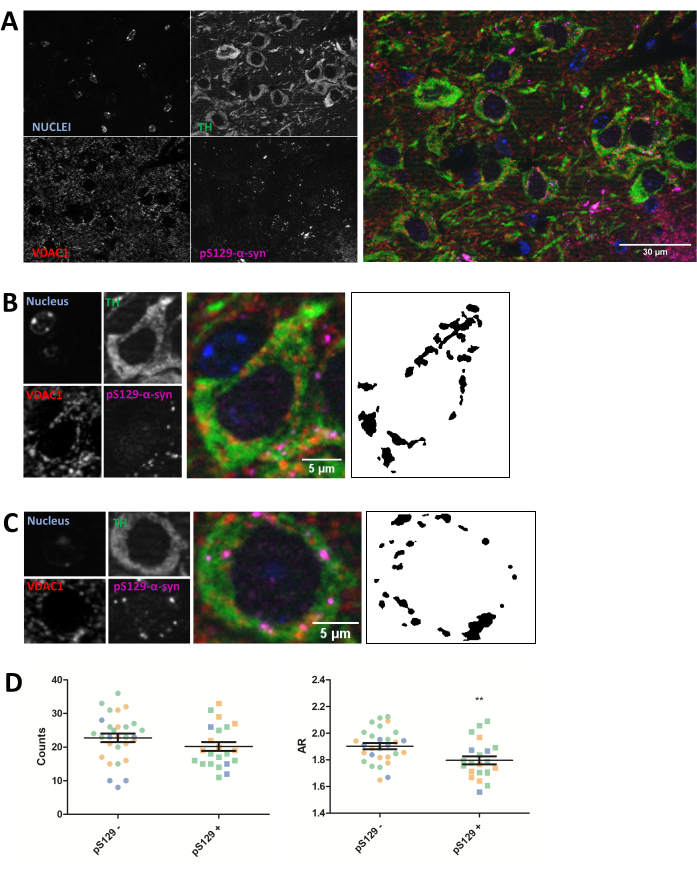
الشكل 2: يتأثر مورفولوجيا الميتوكوندريا في الخلايا العصبية التي تؤوي آفات pS129. التلوين المناعي المشترك ل TH (أخضر) ، VDAC1 (أحمر) ، فوسفوس 129-α-سينوكلين (أرجواني) ، و DAPI (أزرق) من SNc للفئران المحقونة ب PFF (A). تفاصيل الخلايا العصبية الدوبامينية الفوسية 129-α-سينوكلين (pS129-) والخلايا العصبية الدوبامينية الفوسفوسية S129-α-synuclein-positive (pS129+) تمثل الصور بالأبيض والأسود في اللوحتين (B) و (C) أقنعة إشارة TOMM20 بعد تطبيق وظيفة فيجي الموضحة في قسم البروتوكول. يتيح هذا القناع القياس الكمي لشكل الهياكل الناتجة. تم حساب الخلايا السالبة والموجبة في عينات من ثلاثة مختلفة كما هو موضح بالألوان المختلفة للقيم الرسومية الفردية (الأزرق والأخضر والبرتقالي). تم تمثيل عدد الميتوكوندريا والقياس الكمي AR ل pS129- (N = 29) مقابل pS129 + (N = 22) في الخلايا العصبية الدوبامينية كمتوسط ± SEM وكذلك قيم الخلايا الفردية. ** القيمة الاحتمالية < 0.05 t test (D). تم تقييم الحالة الطبيعية من خلال اختبارات D'Agostino و Pearson الطبيعية. قضبان المقياس: A ، 30 ميكرومتر ؛ ب ، ج ، 5 ميكرومتر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
بشكل عام ، تظهر هذه الدراسة أن التلوين المناعي جنبا إلى جنب مع تحليل الصور هو طريقة موثوقة لتحليل مورفولوجيا الميتوكوندريا. في الواقع ، يسمح بتحديد عدد الميتوكوندريا بالإضافة إلى بعض المعلمات المورفولوجية مثل نسبة العرض إلى الارتفاع في كل من زراعة الخلايا والأنسجة. يرتبط عدد الميتوكوندريا ارتباطا مباشرا بالحالة الوظيفية لآليات الانشطار والاندماج للعينات ، بينما تعتمد قيمة AR على استطالة العضية. قد تكون هذه الطريقة ذات قيمة خاصة للتقييم السريع لتشوهات الميتوكوندريا في نماذج PD التي يكون فيها مورفولوجيا الميتوكوندريا المتغيرة وديناميكياتها ووظائفها آليات مرضية معروفة28,29. يلعب α-synuclein أيضا دورا مهما في مرض باركنسون: في الواقع ، يعد α-synuclein أحد مكونات أجسام ليوي ، وهي المجاميع الليفية السيتوبلازمية التي تستخدم لتشخيص مرضى باركنسونبعد الوفاة 30. علاوة على ذلك ، تم العثور على طفرات في جين SNCA في المرضى الذين يعانون من مرض باركنسون مألوف ومتقطع (تمت مراجعته في31). ثبت على نطاق واسع أن فسفرة α-synuclein في Ser129 تسمي علم الأمراض الشبيه بجسم ليوي ، والذي يظهر بعد إهانة PFF ويثير تأثيرات سامة مختلفة32,26.
باستخدام الأداة المعروضة هنا ، تمكنا من اكتشاف انخفاض في عدد الميتوكوندريا وقيم AR في وجود كل من α-synuclein المفرط والتجميع (الخلايا ذات تلطيخ α-synuclein والخلايا العصبية التي تحمل آفات إيجابية phosphoSer129α-synuclein ، على التوالي) مقارنة بالخلايا التي تفتقر إلى مثل هذه الآفات (α-synuclein- و phosphoS129α-synuclein-الخلايا السلبية). تتفق هذه النتائج مع التقارير السابقة التي توضح كيف تنتج تفاعلات α-synuclein-mitochondria المباشرة تأثيرات سامة على وظيفة الميتوكوندريا والتوازن في PD26,33 34. في الواقع ، أفيد أن الفئران التي لديها طفرات α-synuclein تظهر زيادة تلف الحمض النووي للميتوكوندريا35 و mitophagy36,37. علاوة على ذلك ، تم وصف أن زيادة مستويات α-synuclein تعزز انشطار / تجزئة الميتوكوندريا ، وتحفز أنواع الأكسجين التفاعلية داخل الميتوكوندريا ، وخلل تنظيم تعبير بروتين الميتوكوندريا في خطوط الخلايا ونماذج الفئران المفرطة في التعبير عن α-synuclein26،38،39.
من المهم تسليط الضوء على أن هذه الأداة تعتمد بشكل كبير على الأجسام المضادة المستخدمة في الدراسة. يعد التقييم المورفولوجي الدقيق لبقعة الأجسام المضادة المستخدمة أمرا ضروريا للكشف عن المقصورة تحت الخلوية المناسبة. نظرا لأن هذه التقنية تعتمد على أقسام 5 ميكرومتر وبالتالي تتطلب مستويات بؤرية واحدة لتحليل هياكل الميتوكوندريا ، فإن عدم وجود نمط ظاهري لن يستبعد وجود النمط الظاهري ، حيث من الممكن ألا يتم اكتشاف الاختلافات الدقيقة في مورفولوجيا الميتوكوندريا بهذه الطريقة.
في حين أن هذا العمل وغيره قد استخدم سابقا مناهج مماثلة لتقييم مورفولوجيا الميتوكوندريا في الجسم الحي40 ، هناك حاجة إلى بروتوكول مفصل ليكون في متناول مجتمع البحث لهذا التقييم. تكمن أهمية هذه الدراسة في أنه من الممكن تطبيق هذه الطريقة على نماذج مختلفة للأمراض في الجسم الحي لتقييم التشوهات المورفولوجية للميتوكوندريا وتحديد الأمراض المحتملة ، والتي قد تسهل في النهاية فحص مركبات الرصاص لعلاج مثل هذه الاضطرابات. في حين أن هذا التحليل يقتصر حاليا على الأنسجة المضمنة في البارافين ، فإن ميزة الطريقة هي أنه يمكن تطبيقها على أي نموذج مرض بعد جمع الأنسجة الطرفية ، مما يجعلها أداة متعددة الاستخدامات.
الإفصاحات
نود الإبلاغ عن عدم وجود تضارب في المصالح.
شكر وتقدير
نود أن نعرب عن تقديرنا لممولي هذه الدراسة ، وتحديدا Ikerbasque ، ووزارة العلوم والابتكار الإسبانية ، ومؤسسة Michael J Fox ، و IBRO ، ومركز Achucarro Basque لعلم الأعصاب.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 32 G حقنة هاميلتون | هاميلتون | 7632-01 | |
| 4',6-diamidino-2-fenilindol, dihidrocloruro (DAPI) | Invitrogen | D1306 | |
| 4/0 USP 45 سم خياطة | SSa90 pga | 32345n-36u | |
| اليكسا فلور 488/594-الحمار المضادة للماوس | Invitrogen | A21202 ؛ A21203 | صبغة خضراء / حمراء - حمار مضاد للفأر |
| أليكسا فلور 594/647 - حمار مضاد للأرانب ؛ | Invitrogen | A21207 A31573 | أحمر / أحمر بعيد صبغة حمار مضاد للأرانب |
| AlexaFluor 488-Donkey مضاد للدجاج | Jackson ImmunoResearch | 703-545-155 | صبغة خضراء - حمار مضاد للدجاج |
| مضاد ل PSer129 & alpha - synuclein EP1536Y (أرنب) الجسم المضاد | Abcam | ab51253 | |
| الأجسام المضادة ل TOM 20 (الماوس) | سانتا كروز | sc-17764 | |
| التيروزين هيدروكسيلاز (الدجاج) الأجسام المضادة | Abcam | ab76442 | |
| الأجسام المضادة ل VDAC1 (الفأر) | سانتا كروز | sc-390996 | |
| الأجسام المضادة للسيولين المضادة للسجن MJFR1 (أرنب) | Abcam | ab138501 | |
| عازلة السترات 100X المخزون: 120 ملي متر عازلة سترات ، 5٪ توين في الماء (درجة الحموضة 6) قالب | منه محلي الصنع | ||
| لتضمين الأنسجة | فيشر | 22-363-553 | صناديق التضمين البلاستيكية |
| D-MEM F12 | Gibco | A321331020 | |
| EVOS نظام التصوير M7000 | ThermoFisher Scientific | مجهر مضان آلي عالي المحتوى | |
| مصل الأبقار الجنين | Gibco | 10270106 | |
| قاع بصري مسطح 96 لوحة بئر ؛ | Greiner | 675090 | |
| FluorSave Reagents | Millipore | 345789-20ML | كاشف تصاعد |
| الجلوتامين 200 ملي مولار | جيبكو | 25030-024 | |
| ImmEdge مختبرات ناقلات الحاجز الكارهة للماء | H-4000 | PAP-pen | |
| Lipofectamine و Plus Reagent ؛ | Invitrogen | 11668-019; 11514-015 | كاشف التعداء ومساعد التعداء |
| Matrigel | Corning | 354230 | مصفوفة الطلاء |
| Microtome | ThermoFisher Scientific | ||
| Normal Donkey Serum | Gibco | PCN5000 | |
| Opti-MEM | Gibco | 31985070 | تعداء متوسط |
| PCDNA4 بلازميد (العمود الفقري) | Addgene | 41036 | |
| محلول البنسلين / الستربتومايسين | Gibco | 15140-122 | |
| خلايا SH-SY5Y / بئر | ATCC | HTB-11 | |
| بديل الزيلين | Labbox | 22L36504 | |
| Zeiss Axio Imager Apotome 2 | Carl Zeiss | نظام التصوير الفلوري للإضاءة الهيكلية | |
| α-synuclein الببتيد | rpeptide | إس 1010-2 |
المراجع
- Yang, Y., Lu, B. Mitochondrial morphogenesis, distribution, and parkinson disease. Journal of Neuropathology and Experimental Neurology. 68 (9), 953-963 (2009).
- Schapira, A. H. Mitochondria in the aetiology and pathogenesis of Parkinson's disease. The Lancet Neurology. 7 (1), 97-109 (2008).
- Swerdlow, R. H. Mitochondria and mitochondrial cascades in alzheimer's disease. Journal of Alzheimer's Disease. 62 (3), 1403-1416 (2018).
- Hedrich, K., et al. type, and origin of Parkin mutations: Review and case studies. Movement Disorders. 19 (10), 1146-1157 (2004).
- Kahle, P. J., Haass, C. How does parkin ligate ubiquitin to Parkinson's disease. EMBO reports. 5 (7), 681-685 (2004).
- Dawson, T. M., Dawson, V. L. The role of parkin in familial and sporadic Parkinson's disease. Movement Disorders. 25, S32-S39 (2010).
- Pickrell, A. M., Youle, R. J. The Roles of PINK1, Parkin, and Mitochondrial Fidelity in Parkinson's Disease. Neuron. 85 (2), 257-273 (2015).
- Zhi, L., et al. Loss of PINK1 causes age-dependent decrease of dopamine release and mitochondrial dysfunction. Neurobiology of Aging. 75, 1-10 (2019).
- Bonifati, V., et al. DJ-1(PARK7), a novel gene for autosomal recessive, early onset parkinsonism. Neurological Sciences. 24 (3), 159-160 (2003).
- Chia, S. J., Tan, E. -K., Chao, Y. -X. Historical Perspective: Models of Parkinson's Disease. International Journal of Molecular Sciences. 21 (7), 2464(2020).
- Wilson, D. M., Cookson, M. R., Den Bosch, L. V. an, Zetterberg, H., Holtzman, D. M., Dewachter, I. Hallmarks of neurodegenerative diseases. Cell. 186 (4), 693-714 (2023).
- Moore, D. J., West, A. B., Dawson, V. L., Dawson, T. M. Molecular pathophysiology of Parkinson's disease. Annual Review of Neuroscience. 28 (1), 57-87 (2005).
- Olanow, C. W., Tatton, W. G. Etiology and pathogenesis of Parkinson's disease. Annual Review of Neuroscience. 22 (1), 123-144 (1999).
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Okamoto, K., Shaw, J. M. Mitochondrial Morphology and Dynamics in Yeast and Multicellular Eukaryotes. Annual Review of Genetics. 39 (1), 503-536 (2005).
- Malpartida, A. B., Williamson, M., Narendra, D. P., Wade-Martins, R., Ryan, B. J. Mitochondrial Dysfunction and Mitophagy in Parkinson's Disease: From Mechanism to Therapy. Trends in Biochemical Sciences. 46 (4), 329-343 (2021).
- Zou, W., et al. Nanoscopic quantification of sub-mitochondrial morphology, mitophagy and mitochondrial dynamics in living cells derived from patients with mitochondrial diseases. Journal of Nanobiotechnology. 19 (1), 136(2021).
- Navaratnarajah, T., Anand, R., Reichert, A. S., Distelmaier, F. The relevance of mitochondrial morphology for human disease. The International Journal of Biochemistry & Cell Biology. 134, 105951(2021).
- Zambon, F., et al. Cellular α-synuclein pathology is associated with bioenergetic dysfunction in Parkinson's iPSC-derived dopamine neurons. Human Molecular Genetics. 28 (12), 2001-2013 (2019).
- Cherubini, M., Lopez-Molina, L., Gines, S. Mitochondrial fission in Huntington's disease mouse striatum disrupts ER-mitochondria contacts leading to disturbances in Ca2+ efflux and Reactive Oxygen Species (ROS) homeostasis. Neurobiology of Disease. 136, 104741(2020).
- Parihar, M. S., Parihar, A., Fujita, M., Hashimoto, M., Ghafourifar, P. Alpha-synuclein overexpression and aggregation exacerbates impairment of mitochondrial functions by augmenting oxidative stress in human neuroblastoma cells. The International Journal of Biochemistry & Cell Biology. 41 (10), 2015-2024 (2009).
- Wiemerslage, L., Lee, D. Quantification of mitochondrial morphology in neurites of dopaminergic neurons using multiple parameters. Journal of Neuroscience Methods. 262, 56-65 (2016).
- Liu, Y. -T., et al. Mt-Keima detects PINK1-PRKN mitophagy in vivo with greater sensitivity than mito-QC. Autophagy. 17 (11), 3753-3762 (2021).
- Shoshan-Barmatz, V., Shteinfer-Kuzmine, A., Verma, A. VDAC1 at the intersection of cell metabolism, apoptosis, and diseases. Biomolecules. 10 (11), 1485(2020).
- Luk, K. C., et al. Pathological α-Synuclein transmission initiates parkinson-like neurodegeneration in nontransgenic mice. Science. 338 (6109), 949-953 (2012).
- Ryan, B. J., et al. REST protects dopaminergic neurons from mitochondrial and α-synuclein oligomer pathology in an alpha synuclein overexpressing BAC-transgenic mouse model. The Journal of Neuroscience. 41 (16), 3731-3746 (2021).
- Yamamoto, H., et al. Dual role of the receptor Tom20 in specificity and efficiency of protein import into mitochondria. Proceedings of the National Academy of Sciences. 108 (1), 91-96 (2011).
- Exner, N., Lutz, A. K., Haass, C., Winklhofer, K. F. Mitochondrial dysfunction in Parkinson's disease: molecular mechanisms and pathophysiological consequences. The EMBO Journal. 31 (14), 3038-3062 (2012).
- Grünewald, A., Kumar, K. R., Sue, C. M. New insights into the complex role of mitochondria in Parkinson's disease. Progress in Neurobiology. 177, 73-93 (2019).
- Baba, M., et al. Aggregation of alpha-synuclein in Lewy bodies of sporadic Parkinson's disease and dementia with Lewy bodies. The American journal of pathology. 152 (4), 879-884 (1998).
- Vázquez-Vélez, G. E., Zoghbi, H. Y. Parkinson's disease genetics and pathophysiology. Annual Review of Neuroscience. 44 (1), 87-108 (2021).
- Mahul-Mellier, A. -L., et al. The process of Lewy body formation, rather than simply α-synuclein fibrillization, is one of the major drivers of neurodegeneration. Proceedings of the National Academy of Sciences. 117 (9), 4971-4982 (2020).
- Ganguly, U., et al. Interaction of α-synuclein and Parkin in iron toxicity on SH-SY5Y cells: implications in the pathogenesis of Parkinson's disease. Biochemical Journal. 477 (6), 1109-1122 (2020).
- Ganjam, G. K., et al. Mitochondrial damage by α-synuclein causes cell death in human dopaminergic neurons. Cell Death & Disease. 10 (11), 865(2019).
- Martin, L. J., et al. Parkinson's Disease α-synuclein transgenic mice develop neuronal mitochondrial degeneration and cell death. The Journal of Neuroscience. 26 (1), 41-50 (2006).
- Choubey, V., et al. Mutant A53T α-Synuclein induces neuronal death by increasing mitochondrial autophagy. Journal of Biological Chemistry. 286 (12), 10814-10824 (2011).
- Chen, L., Xie, Z., Turkson, S., Zhuang, X. A53T Human α-synuclein overexpression in transgenic mice induces pervasive mitochondria macroautophagy defects preceding dopamine neuron degeneration. The Journal of Neuroscience. 35 (3), 890-905 (2015).
- Kamp, F., et al. Inhibition of mitochondrial fusion by α-synuclein is rescued by PINK1, Parkin and DJ-1. The EMBO Journal. 29 (20), 3571-3589 (2010).
- Nakamura, K., et al. Direct membrane association drives mitochondrial fission by the parkinson disease-associated protein α-synuclein. Journal of Biological Chemistry. 286 (23), 20710-20726 (2011).
- Park, J., et al. Abnormal mitochondria in a non-human primate model of MPTP-induced Parkinson's disease: Drp1 and CDK5/p25 signaling. Experimental Neurobiology. 28 (3), 414-424 (2019).
إعادة الطباعة والأذونات
