الطريقة المطورة لوضع العلامات على الجلوكوز 13C6-جنبا إلى جنب مع قياس الطيف الكتلي عالي الدقة للكروماتوغرافيا السائلة متعددة الاستخدامات وتضع الأساس للدراسات المستقبلية حول الأعضاء والمسارات الأولية المشاركة في تخليق المستقلبات الثانوية في النباتات الطبية ، وكذلك الاستخدام الشامل لهذه المستقلبات الثانوية.
مقالة منهجية
13C6-وسم الجلوكوز المرتبط ب LC-MS: تحديد الأعضاء الأولية للنبات في تخليق الأيض الثانوي
في هذه المقالة
ملخص
الملخص
تقدم هذه الورقة طريقة جديدة وفعالة لاعتماد الأعضاء الأولية المشاركة في تخليق الأيض الثانوي. كأهم مستقلب ثانوي في باريسبوليفيلا فار يونانينسيس (فرانش.) يد. -Mzt. (PPY) ، باريس سابونين (PS) لديها مجموعة متنوعة من الأنشطة الدوائية و PPY في زيادة الطلب. أنشأت هذه الدراسة حزمة الأوراق والجذور والأوعية الدموية الجذعية 13C6-تغذية الجلوكوز وعدم التغذية بأربعة علاجات للتصديق بدقة على الأعضاء الأولية المشاركة في تخليق باريس سابونين السابع (PS VII). من خلال الجمع بين قياس الطيف الكتلي اللوني السائل (LC-MS) ، تم حساب نسب 13C / 12C للأوراق والجذور والساق والجذر في معالجات مختلفة بسرعة وبدقة ، وتم العثور على أربعة أنواع من نسب ذروة الأيونات النظيرية PS (M−): (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − و (M + 4) - / M−. أظهرت النتائج أن نسبة 13درجة مئوية / 12درجة مئوية في جذور حزمة الساق والأوعية الدموية وعلاجات تغذية الجذور كانت أعلى بكثير من تلك الموجودة في العلاج غير التغذوي. بالمقارنة مع المعالجة غير التغذوية ، زادت نسبة جزيئات PS VII (M + 2) - / M − في الأوراق بشكل ملحوظ تحت معالجات تغذية الأوراق والأوعية الدموية الجذعية. في الوقت نفسه ، مقارنة بالمعالجة غير المغذية ، لم تظهر نسبة جزيئات PS VII (M + 2) - / M − في الأوراق تحت معالجة جذمور أي فرق كبير. علاوة على ذلك ، لم تظهر نسبة جزيئات PS VII (M + 2) - / M − في الساق والجذر والجذمور أي اختلافات بين العلاجات الأربعة. بالمقارنة مع المعالجة غير المغذية ، لم تظهر نسبة جزيء باريس سابونين II (PS II) (M + 2) - / M − في الأوراق تحت معالجة تغذية الأوراق أي فرق كبير ، وكانت نسبة (M + 3) - / M − لجزيئات PS II في الأوراق تحت معالجة تغذية الأوراق أقل. أكدت البيانات أن العضو الأساسي لتوليف PS VII هو الأوراق. إنه يضع الأساس لتحديد الأعضاء والمسارات الأولية المشاركة في تخليق المستقلبات الثانوية في النباتات الطبية في المستقبل.
المقدمة
مسارات التخليق الحيوي للمستقلبات الثانوية في النباتات معقدة ومتنوعة ، وتشمل أعضاء تراكم محددة ومتنوعة للغاية1. في الوقت الحاضر ، لم يتم تحديد مواقع التوليف المحددة والأجهزة المسؤولة عن المستقلبات الثانوية في العديد من النباتات الطبية بشكل جيد. يشكل هذا الغموض عقبة كبيرة أمام التقدم الاستراتيجي وتنفيذ طرق الزراعة المصممة لتحسين كل من إنتاجية وجودة المواد الطبية.
يتم استخدام البيولوجيا الجزيئية والكيمياء الحيوية وتقنيات وضع العلامات على النظائر على نطاق واسع لكشف مسارات التوليف ومواقع المستقلبات الثانوية في النباتات الطبية2،3،4،5 ، وتظهر كل من هذه المنهجيات نقاط قوة وقيود فريدة ، مثل الاختلافات في الكفاءة والدقة. تقدم مناهج البيولوجيا الجزيئية ، على سبيل المثال ، دقة عالية في تحديد المواقع داخل مسارات التخليق الحيوي ولكنها تستغرق وقتا طويلا بشكل ملحوظ. ففائدتها مقيدة بشكل أكبر بالنسبة للأنواع التي تفتقر إلى التسلسلات الجينومية المتاحة للجمهور ، مما يجعل هذه التقنيات أقل قابلية للتطبيق في مثل هذه الحالات6. وعلى النقيض من ذلك، توفر تقنيات توسيم النظائر، التي تستخدم نسب نظائر مثل 3C/12 C،و2 H/1H، و18O/16O، وسيلة سريعة وسهلة المنال للتحقيق في آليات تخليق ونقل وتخزين المستقلبات الثانوية 7,8. يمكن أن تكشف عن التوزيع المكاني للمركبات العضوية والنظائر المستقرة في الأوراق ، مما يسمح بإعادة بناء الظروف البيئية التي تمر بها الأوراق طوال دورة حياتها9. وعلاوة على ذلك، فإن تطبيق العلامات النظيرية الخارجية، مثل 13C6-Glucose 10 و 13C6-Phenylalanine 11، يمكن من توليد مستقلبات ثانوية موسومة بالكربون، مما يعزز فهمنا لإنتاجها ووظيفتها.
تواجه التقنيات التقليدية لوضع العلامات على نظائر الكربون تحديات في تحديد الأعضاء المحددة المسؤولة عن تخليق المستقلبات الثانوية بسبب الطبيعة الخاصة بالأنواع لمسارات التخليق الحيوي وآليات النقل. برز قياس الطيف الكتلي للكروماتوغرافيا السائلة (LC-MS) كأداة تحليلية محورية في هذا المجال ، حيث يقدم طريقة قوية لتتبع النظائر الخارجية في التخليق الكيميائي للأدوية والتحقيق في العمليات في الجسم الحي مثل الامتصاص والتوزيع والتمثيل الغذائي والإفراز12. إن الحساسية الفائقة والاستقامة والموثوقية ل LC-MS تجعله خيارا مثاليا لمراقبة إنتاج المستقلبات الثانوية في النباتات13. في الآونة الأخيرة ، أصبح LC-MS مفضلا بشكل متزايد لتطبيقه في تقنيات وضع العلامات على النظائر الخارجية ، مما يتيح تقييم كفاءة وضع العلامات عبر عينات مختلفة. توفر هذه المنهجية رؤى نقدية للأعضاء الأولية المشاركة في تخليق المستقلبات الثانوية في النباتات الطبية ، حيث تعمل كمكمل لا يقدر بثمن للطرق البيولوجية لتحديد أعضاء التوليف لهذه المركبات14,15. وبالتالي ، فإن هذا النهج لا يسهل مقارنة كفاءات وضع العلامات بين العينات المختلفة فحسب ، بل يلقي الضوء أيضا على الأعضاء الرئيسية المتورطة في توليد المستقلبات الثانوية النباتية ، وبالتالي تعزيز فهمنا لتخليقها الحيوي.
قدمنا طريقة جديدة تجمع بين وضع العلامات على نظائر الكربون واكتشاف LC-MS لتحديد الأعضاء الأولية المسؤولة عن توليف المستقلبات الثانوية في النباتات الطبية. يحتوي باريس سابونين (PS) على مجموعة متنوعة من الأنشطة الدوائية مثل مضاد السرطان ، والتعديل المناعي ، ومضاد الالتهاب16 ، ويزداد الطلب على PPY17. لذلك ، استخدمنا شتلات PPY كمواضيع بحثية وفككنا شفرة أن الأوراق هي العضو الأساسي لتجميع باريس سابونين السابع (PS VII) (الشكل 1B) باستخدام ملصق 13C6-Glucose المرتبط بطريقة LC-MS. تضمن نهجنا أربعة علاجات مختلفة تتضمن تغذية 13C6-Glucose لحزم الأوراق والجذور والأوعية الدموية الجذعية ، بالإضافة إلى التحكم في عدم التغذية. يعد اختيار 13C6-Glucose استراتيجيا ، حيث يتم استقلابه بسرعة إلى أنزيم الأسيتيل A عن طريق التنفس ، مما يسهل بعد ذلك تخليق PS. باستخدام الوفرة الطبيعية ل 13درجة مئوية ، استخدمنا نظام مطياف كتلة نسبة النظائر المستقرة (GC-IRMS) لتقييم نسب 13C / 12C عبر أعضاء النبات المختلفة ولتحليل نسب ذروة الأيونات النظيرية في جزيئات PS VII و Paris saponins II (PS II) (الشكل 1B). تقدم منهجيتنا ، التي تستفيد من 13من سلائف الأيض الثانوي للنبات الموسومة C وتقنيات قياس الطيف الكتلي المتطورة ، بديلا أبسط وأكثر دقة لطرق وضع العلامات التقليدية على نظائر الكربون. هذا النهج الجديد لا يعمق فهمنا للأعضاء المشاركة في تخليق الأيض الثانوي في النباتات الطبية فحسب ، بل يضع أيضا أساسا متينا للاستكشافات المستقبلية في مسارات التخليق الحيوي لهذه المركبات.
البروتوكول
1. التحضير التجريبي
- تأكد من أنه أثناء نمو النبات ، تكون الرطوبة النسبية للاحتباس الحراري 75٪ ، ودرجات الحرارة ليلا ونهارا 20 درجة مئوية / 10 درجة مئوية ، وتتكون الفترة الضوئية من 12 ساعة نهارا و 12 ساعة ليلا ، وشدة الضوء 100 ميكرومول · م -2 · ث -1. توفير الإشعاع عبر مصابيح الصمام الثنائي الباعث للضوء (LED) ، مع الحفاظ على مسافة 30 سم بين مصباح LED ومظلة المصنع.
ملاحظة: الفترة الضوئية وشدة الضوء وفقا لعدد ساعات سطوع الشمس خلال فترة النمو في يونان. يتم قياس الإشعاع بشكل روتيني بواسطة مستشعر كمي (انظر جدول المواد). قم بإجراء التغييرات اللازمة في المعلمات البيئية وفقا لخصائص النبات الطبي. بمجرد معايرة هذه الظروف البيئية بعناية بناء على خصائص النبات وملف ضوء الشمس الإقليمي ، من الأهمية بمكان الحفاظ على الاتساق في هذه الإعدادات طوال مدة التجربة. يمكن أن تؤدي التغييرات التعسفية في المعلمات البيئية بعد إنشائها الأولي إلى الإضرار بسلامة التجربة وموثوقية النتائج. - استخدم نهج الزراعة المائية18 لضمان دقة وخصوصية تجربتنا. تأكد من أن شتلات PPY المغسولة البالغة من العمر عامين (التي تم حصادها من وينشان بمقاطعة يوننان (104 ° 11 ′ E ، 23 ° 04 ′ N) مغمورة في تركيز قياسي 1/4 من محلول المغذيات Hoagland لمدة 3 أيام للتكيف.
- تحضير محلول Hoagland المغذي (انظر جدول المواد) وفقا للتعليمات ؛ أضف 1.26 جم من مسحوق Hoagland و 0.945 جم من مسحوق نترات الكالسيوم إلى 4 لتر من الماء النقي. تحضير محلول 13C6-Glucose (انظر جدول المواد) كما هو موضح في الدليل القياسي ؛ أضف 0.2 جم من مسحوق 13C6-Glucose إلى 100 مل من الماء النقي أو محلول Hoagland المغذي.
- قم بإعداد الخزان المائي ومضخة الأكسجين (الشكل 2 ؛ انظر جدول المواد).
ملاحظة: في الإعداد المائي ، فإن استخدام محلول 13C 6-Glucose لوضع العلامات يتحايل على تأثير الكائنات الحية الدقيقة في التربة ، وبالتالي ضمان أن المحلول يساهم بشكل مباشر في التوليف السريع للمستقلبات الثانوية في النباتات الطبية. لتحسين ظروف امتصاص النباتات ل 13C 6-Glucose ، من الضروري تنظيم معدل تدفق مضخة الأكسجين بين 4 و 8 لتر / دقيقة. يعد معدل التدفق المتحكم فيه هذا أمرا بالغ الأهمية لمنع الشتلات من الطفو فوق سطح الماء ، مما قد يعيق بشكل كبير قدرتها على امتصاص 13C6-Glucose بشكل فعال. يسمح الحفاظ على الشتلات المغمورة على العمق الصحيح بالامتصاص الفعال لمركب الملصقات ، وبالتالي ضمان نجاح عملية تخليق المستقلب في النظام المائي.
2. عملية تجربة وضع العلامات الكربونية
- قم بإعداد أربعة علاجات وتتبع أجهزة التوليف ومسارات PS VII و PS II في PPY لإثبات أن الأوراق هي العضو الأساسي لتجميع PS.
- في العلاج 1 ، لا تتغذى شتلة PPY ؛ في العلاج 2 ، رش أوراق الشتلات PPY بنسبة 0.2٪ 13C 6-الجلوكوز ؛ في العلاج 3 ، قم بإطعام جذور الشتلات PPY بنسبة 0.2٪ 13C6-Glucose ؛ في العلاج 3 ، قم بتغذية شتلة PPY عند شق الساق بنسبة 0.2٪ 13C6-Glucose (الشكل 2A).
ملاحظة: يتم تعيين العلاج 1 كمجموعة تحكم. تم إعداد العلاج 2 لإثبات أن الأوراق يمكنها توليف PS. تم إعداد العلاجات 3 و 4 لإثبات أن الجذور يمكن أن تستهلك 13C6-Glucose. - في العلاجين 1 و 2 ، قم بزراعة شتلات PPY في محلول Hoagland المغذي العادي. رش 5 مل من 0.2٪ 13ج6-محلول الجلوكوز مرة واحدة في الصباح وبعد الظهر والمساء على أوراق العلاج 2.
- في العلاجين 3 و 4 ، قم بزراعة شتلات PPY في محلول Hoagland المغذي الذي يحتوي على 0.2٪ 13C6-Glucose. في العلاج 4 ، استخدم مشرطا (انظر جدول المواد) لقطع سيقان شتلات PPY من المنتصف مع إبقاء حزم الأوعية الدموية متصلة.
- اسمح بتسمية كل علاج لمدة 3 أيام ، وقم بتغيير محلول المغذيات كل 1.5 يوم. قم بإجراء التجربة باستخدام تصميم كتلة عشوائية وكرر كل علاج 3x.
ملاحظة: عند رش الأوراق ، من المهم وضع ورقة ماصة خلف الأوراق التي تم رشها. هذا يمنع قطرات الماء من السقوط في محلول المغذيات أدناه ، مما قد يؤثر على نتائج التجربة. لا تتم إزالة جميع الجروح الموجودة في السيقان ولكن لها قنوات متصلة مرئية بالعين المجردة.
- في العلاج 1 ، لا تتغذى شتلة PPY ؛ في العلاج 2 ، رش أوراق الشتلات PPY بنسبة 0.2٪ 13C 6-الجلوكوز ؛ في العلاج 3 ، قم بإطعام جذور الشتلات PPY بنسبة 0.2٪ 13C6-Glucose ؛ في العلاج 3 ، قم بتغذية شتلة PPY عند شق الساق بنسبة 0.2٪ 13C6-Glucose (الشكل 2A).
3. طرق أخذ العينات والتحضير
- اجمع الأوراق والسيقان والجذور والجذور من كل علاج على حدة في نهاية تجربة الجلوكوز 13C6 التي استمرت 3 أيام. اغسل أعضاء النبات المجمعة جيدا لإزالة الشوائب السطحية.
ملاحظة: يمكن العثور على عدم وجود وفرة 13درجة مئوية من خلال تحليل LC-MS لمحلول الغسيل ، مما يثبت أن الغسيل نظيف19. - استخدم فرن تجفيف كهربائي بدرجة حرارة ثابتة (انظر جدول المواد) لتجفيف أعضاء النبات المغسولة. ابدأ من 105 درجة مئوية لمدة 30 دقيقة ثم اضبط على 60 درجة مئوية حتى وزن ثابت. سحق أعضاء النبات المجففة إلى مسحوق باستخدام مطحنة سريعة أوتوماتيكية بالكامل (انظر جدول المواد).
ملاحظة: يستخدم المسحوق للتحليل الكمي لنسب PS VII و II و 13C / 12C في أعضاء النبات المختلفة. - استخدم ميزان تحليلي إلكتروني (انظر جدول المواد) لوزن 30 مجم من المسحوق بدقة لكل عينة ووضعه في 2 مل من 75٪ v / v من الإيثانول والماء. استخدم منظف بالموجات فوق الصوتية CNC (انظر جدول المواد) وقم بإجراء استخراج بالموجات فوق الصوتية عند 25 درجة مئوية لمدة 20 دقيقة (60 كيلو هرتز) ، كرر 2x ؛ دمج حلول الاستخراج وإعداد ثلاث عينات متوازية20.
ملاحظة: يجب تقليل الأخطاء في وزن العينة. - استخدم النيتروجين لتجفيف محلول الاستخراج ، ثم يذوب في الميثانول الكروماتوجرافي إلى حجم 1 مل. قبل الحقن ، استخدم مرشح طور عضوي 0.22 ميكرومتر (انظر جدول المواد) للترشيح (الشكل 2 ب).
ملاحظة: لا تفجر المستخلص عند التجفيف بغاز النيتروجين ؛ يجب أن يمر المستخلص عبر غشاء صغير يسهل اختراقه لضمان تداخل الشوائب إلى الحد الأدنى.
4. إعداد وتشغيل LC-MS
- إعداد مرض التصلب العصبي المتعدد
- قم بتنشيط مضخة التفريغ عن طريق قلب مفتاحها إلى وضع التشغيل. افتح الصمام الرئيسي على أسطوانة غاز الأرجون ، ثم اضبط صمام الضغط الجزئي لتحقيق ضغط مستهدف يبلغ حوالي 0.3 ميجا باسكال. بعد ذلك ، تأكد من فتح صمام غاز النيتروجين أيضا.
- قم بتشغيل برنامج التحكم MS (انظر جدول المواد). انقر فوق مصدر التأين بالرش الكهربائي المسخن (مصدر HESI) في لوحة البرنامج ، وأدخل المعلمات ، بما في ذلك الجهد الشعري (3.0 كيلو فولت للوضع السلبي) ، ودرجة حرارة الشعيرات الدموية (350 درجة مئوية) ، ومعدل تدفق غاز الغمد (N2) (35 وحدة تعسفية) ، والغاز المساعد (N2) معدل التدفق (15 وحدة تعسفية) ، من خلال المسح الكامل على أساس الكتلة الجزيئية ل PS (تعمل من m / z 100-1500). انقر فوق الزر "تطبيق" لتنشيط مصدر الأيون.
ملاحظة: انتظر لمدة 8 ساعات على الأقل لضمان درجة فراغ كافية للظروف التجريبية. تأكد من أن ضغط الغاز في الأرجون والنيتروجين مرتفع بدرجة كافية قبل التحليل.
- LC prerun
- تحضير المرحلة المتنقلة A عن طريق خلط 0.1٪ حمض الفورميك مع الماء واستخدام الأسيتونيتريل للمرحلة المتنقلة B (انظر جدول المواد). Degas كلتا المرحلتين في سونيكاتور حمام الموجات فوق الصوتية لمدة 15 دقيقة للقضاء على الغازات الذائبة. بعد ذلك ، قم بتوصيل المرحلة المتنقلة A بممر السوائل الخاص بها وافعل الشيء نفسه مع المرحلة المتنقلة B. أخيرا ، امزج محلول ماء الميثانول 1: 9 فولت / فولت لسائل التنظيف واملأ المضخة وزجاجات الحاقن يدويا.
ملاحظة: تردد صوتنة حمام الموجات فوق الصوتية هو 40 كيلو هرتز.
- تحضير المرحلة المتنقلة A عن طريق خلط 0.1٪ حمض الفورميك مع الماء واستخدام الأسيتونيتريل للمرحلة المتنقلة B (انظر جدول المواد). Degas كلتا المرحلتين في سونيكاتور حمام الموجات فوق الصوتية لمدة 15 دقيقة للقضاء على الغازات الذائبة. بعد ذلك ، قم بتوصيل المرحلة المتنقلة A بممر السوائل الخاص بها وافعل الشيء نفسه مع المرحلة المتنقلة B. أخيرا ، امزج محلول ماء الميثانول 1: 9 فولت / فولت لسائل التنظيف واملأ المضخة وزجاجات الحاقن يدويا.
- إنشاء طريقة LC
- حدد زر "إعداد الأداة" للوصول إلى نافذة تحرير الطريقة.
- اضغط على الزر "جديد" لبدء إنشاء طريقة أداة LC-MS جديدة.
- قم بتعيين إجمالي وقت التشغيل لطريقة LC. بعد ذلك ، أدخل القيم اللازمة لحد الضغط ومعدل التدفق الكلي وتدرج التدفق ودرجة حرارة العينة ودرجة حرارة العمود ودلتا درجة الحرارة الجاهزة داخل نافذة تحرير الطريقة.
ملاحظة: تم تصميم إعدادات طريقة أداة LC-MS وفقا للمادة المراد تحليلها ونوع عمود الكروماتوغرافيا السائل المستخدم. للحصول على أفضل النتائج، استخدم معدل تدفق 0.3 مل/دقيقة مع الحفاظ على عمود BEH C18 عند 40 درجة مئوية (انظر جدول المواد). يتم تكوين شطف التدرج على النحو التالي: ابدأ من 10٪ B ، وزاد خطيا إلى 30٪ B خلال 8 دقائق ، ثم إلى 45٪ B من 8 إلى 16 دقيقة ، إلى 50٪ B من 16 إلى 24 دقيقة ، وإلى 70٪ B من 24 إلى 30 دقيقة. بعد ذلك مباشرة ، أعد التدرج إلى حالة 10٪ B الأولية في غضون 0.1 دقيقة ، واحتفظ به هناك لمدة 2.9 دقيقة إضافية. حقن حجم عينة من 5 ميكرولتر لكل تحليل. تعتمد إعدادات طريقة أداة LC-MS على المادة المحددة المراد تحليلها ونوع عمود الكروماتوغرافيا السائل المستخدم21.
- اكتساب مرض التصلب العصبي المتعدد
- في علامة التبويب الإعدادات ، اختر إما نوع تجربة MS العام أو MSn لتكوين طريقة MS. أدخل القيم اللازمة لإعداد وقت الاستحواذ ، والقطبية (موجبة أو سلبية) ، ورقم صمام تحويل النطاق الشامل ، ومدة صمام التحويل. بعد إدخال هذه التفاصيل ، انقر فوق الزر "حفظ" لإنهاء هذه الإعدادات وحفظها كطريقة أداة.
ملاحظة: الإعدادات الافتراضية بدون عمود كروماتوغرافي هي كما يلي: وقت الاستحواذ ، 2 دقيقة ؛ قطبية ، إيجابية أو سلبية ؛ نطاق الكتلة ، من 100 إلى 1500.
- في علامة التبويب الإعدادات ، اختر إما نوع تجربة MS العام أو MSn لتكوين طريقة MS. أدخل القيم اللازمة لإعداد وقت الاستحواذ ، والقطبية (موجبة أو سلبية) ، ورقم صمام تحويل النطاق الشامل ، ومدة صمام التحويل. بعد إدخال هذه التفاصيل ، انقر فوق الزر "حفظ" لإنهاء هذه الإعدادات وحفظها كطريقة أداة.
- إجراء قياس الطيف الكتلي متعدد المراحل وفقا للطرق التقليدية.
- استخدم دائما وضع الاستحواذ المعتمد على البيانات (DDA) لجمع البيانات في قياس الطيف الكتلي متعدد المراحل. في وضع DDA ، يحدد مطياف الكتلة الأيونات الخمسة الأكثر كثافة خلال كل مسح في المرحلة الأولى من MS الترادفي ، والتي يتم تجزئتها وفحصها لاحقا في المرحلة الثانية من قياس الطيف الكتلي الترادفي.
ملاحظة: يمكن استخدام بيانات MS و MS / MS التي تم جمعها للتحليل اللاحق والبحث في قاعدة البيانات.
- استخدم دائما وضع الاستحواذ المعتمد على البيانات (DDA) لجمع البيانات في قياس الطيف الكتلي متعدد المراحل. في وضع DDA ، يحدد مطياف الكتلة الأيونات الخمسة الأكثر كثافة خلال كل مسح في المرحلة الأولى من MS الترادفي ، والتي يتم تجزئتها وفحصها لاحقا في المرحلة الثانية من قياس الطيف الكتلي الترادفي.
5. الحصول على البيانات يدويا وتحليلها وحسابها
- الحصول على البيانات وتحليلها
- انقر نقرا مزدوجا فوق الملفات الأولية لفتح جميع أطياف الكتلة من MS. احسب يدويا قيم الفرق m / z بين الأيون وأيونات الشظايا المقابلة.
- قم باستيراد ملفات البيانات الأولية لمعالجات التحكم والعينات والفراغات إلى برنامج تحليل قياس الطيف الكتلي لتحديد PSs عن طريق حساب كتلة وشظايا PS بدقة.
ملاحظة: يتم تحديد PS VII وPS II بالمقارنة مع أوقات الاحتفاظ وتجميع الحلول القياسية الأصلية. يكتشف LC-MS سلسلة من القمم الصغيرة في مواقع قمم الأيونات الجزيئية. نسبة كل سلسلة من قمم الأيونات النظيرية ثابتة. عندما يتم إعطاء نظائر خارجية 13C ، تزداد الوفرة الإجمالية 13C في النبات ، وتتغير نسب سلسلة قمم أيون النظائر في المستقلبات الثانوية للنبات. يتم تعيين الحد الأقصى لتحمل الخطأ الشامل عند 5 جزء في المليون. - مسح نطاق الكتلة m / z 500-1,500 لتحديد الذروة الأساسية. حدد الوزن الجزيئي الدقيق إلى 4 منازل عشرية ، وفقا للوزن الجزيئي الدقيق ووقت الاحتفاظ بالجزيء المستهدف. ابحث عن منطقة الذروة لتدفق أيون النظائر التسلسلي واشتق قيم M− و (M + 1) - و (M + 2) - و (M + 3) - و (M + 4) -. عندما تحتوي المرحلة المتحركة على حمض الفورميك ، تشتمل الأيونات السالبة أيضا على (M + COOH) - ، (M + COOH + 1) - ، (M + COOH + 2) - ، (M + COOH + 3) - و (M + COOH + 4) - .
ملاحظة: يؤدي اختيار القمم ضمن نطاق الكتلة m / z 500-1,500 إلى تحسين دقة تحديد قمم الأيونات الجزيئية ل PS VII و PS II. على سبيل المثال ، يتأين طيف كتلة الأيونات السالبة ل PS VII (C51H82O21 ، 1030.5349) بشكل أساسي مع أيونات COOH− في خليط حمض الفورميك والماء. تشمل أيونات النظائر التسلسلية المرصودة 1029.53− و 1030.54− و 1031.54− و 1032.55− و 1033.55− وتمتد إلى 1079.56−.
- حساب البيانات
- لتقليل تأثير الوفرة الطبيعية 13درجة مئوية ، احسب نسب التيارات الأيونية الموسومة إلى التيارات الأيونية غير المسماة لكل عضو تحت معالجات مختلفة ، مع التركيز بشكل خاص على النسب (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − و (M + 4) - / M−. للتمييز بين النظائر الموسومة والتي تحدث بشكل طبيعي لإجراء تقييم دقيق لدمج 13C ، احسب هذه النسب ل n = 1 ، 2 ، 3 ، 4 باستخدام المعادلة (1).
النسبة = أ (م + 2) - / صباحا - (1)
ملاحظة: (M + 2) - تشمل (M + 2 + COOH) - و (M + 2) - ؛ M− تشمل (M + COOH) - و M−.
ملاحظة: هنا ، يشير M− إلى مناطق الذروة المجمعة للتيارات الأيونية ل (M + COOH) - و M - ، المتأينة بشكل أساسي مع COOH - في ماء حمض الفورميك. A يمثل منطقة الذروة. على سبيل المثال ، يتم توضيح الصيغ لحساب نسب PS VII على النحو التالي:
النسبة + 1 = (A1030.54 + A1076.55) / (A1029.53 + A1075.55)
النسبة + 2 = (A1031.54 + A1077.55) / (A1029.53 + A1075.55)
النسبة + 3 = (A1032.55 + A1078.56) / (A1029.53 + A1075.55)
النسبة + 4 = (A1033.55 + A1079.56) / (A1029.53 + A1075.55)
- لتقليل تأثير الوفرة الطبيعية 13درجة مئوية ، احسب نسب التيارات الأيونية الموسومة إلى التيارات الأيونية غير المسماة لكل عضو تحت معالجات مختلفة ، مع التركيز بشكل خاص على النسب (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − و (M + 4) - / M−. للتمييز بين النظائر الموسومة والتي تحدث بشكل طبيعي لإجراء تقييم دقيق لدمج 13C ، احسب هذه النسب ل n = 1 ، 2 ، 3 ، 4 باستخدام المعادلة (1).
النتائج
للتأكد من أن إمداد 13C6-Glucose في الجذور كان ناجحا ، قمنا بتحليل نسب نظائر 13C / 12C في الجذور. كانت نسب النظائر 13C / 12C للمعالجات 3 و 4 أعلى بكثير من تلك الخاصة بالعلاج 2 (الشكل 1 أ). أشارت النتائج إلى أن 13C6-Glucose من العلاج 3 و 4 دخلت الجذور من خلال الابتلاع.
عادة ما تظل نسب قمم نظائر 13C ، مثل (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − ، و (M + 4) - / M − ، ثابتة. المركبات المشار إليها ب 13C المضافة خارجيا لها نفس التركيب الجزيئي ، والأوزان الجزيئية المماثلة ، والخصائص الفيزيائية والكيميائية ، وأوقات الاحتفاظ مثل نظيراتها غير المصنفة. ومع ذلك ، عندما تم تحليل هذه المركبات الموسومة باستخدام قياس الطيف الكتلي ، تغيرت نسب ذروة أيون النظائر. في دراستنا ، استخدمنا LC-MS للكشف عن PS VII و PS II في أربعة أعضاء مختلفة من PPY في علاجات مختلفة (الشكل 3). بالمقارنة مع العلاج 1 ، أشارت النتائج إلى زيادة معنوية في نسبة PS VII (M + 2) - / M − في أوراق PPY المعالجة ب 13C الخارجية (الشكل 3B). خاصة في العلاج 2 ، حيث تم رش أوراق PPY ب 13C6-Glucose ، تم تصنيع PS VII المميز بذرتين 13C. ومع ذلك ، في العلاج 4 ، لم يكن لنسبة جزيئات PS VII (M + 2) - / M − في الأوراق فرق كبير بين العلاج الجذري وغير المغذي ، ولم تظهر نسب جزيئات PS VII (M + 1) - / M− ، (M + 3) - / M− ، (M + 4) - / M− في الساق والجذمور والجذر عبر جميع العلاجات الأربعة عدم وجود فروق ذات دلالة إحصائية (الشكل 3 أ ، ج ، د). بالإضافة إلى ذلك ، زادت نسبة جزيئات PS II (M + 2) - / M − ببطء في العلاج 2 (الشكل 3F). لم تكن هناك فروق ملحوظة في نسب جزيئات PS II (M + 1) - / M − و (M + 4) - / M − في الأوراق بين العلاجين 1 و 2 (الشكل 3E ، H) ، بينما أظهرت نسبة جزيئات PS II (M + 3) - / M − انخفاضا ملحوظا في الأوراق في العلاج 2 مقارنة بالمعالجة 1 (الشكل 3G). تشير هذه النتائج إلى أن تخليق PS VII يحدث بالفعل في الأوراق المعالجة ب 13C 6-Glucose ، بما يتماشى مع مسار التخليق الحيوي المعروف ل PSs.
يقترح نهجنا الورقة كعضو أساسي لتخليق PS VII في PPY ، على النقيض من توليف PS II. والجدير بالذكر أن 13PS VII المسمى C كان غائبا في جذمور بعد معالجة الأوراق ب 13C 6-Glucose ، مما يعني بطء نقل PS VII من الأوراق إلى الجذور. في المقابل ، تم الكشف عن 13PS II المسمى C في الجذمور بعد معالجات وضع العلامات على حزمة الأوعية الدموية الجذعية والجذور ، مما يشير إلى تخليق جذمور محتمل في هذه المرحلة ويستلزم مزيدا من الاستكشاف لمواقع تخليق PS II. يتماشى الكشف الحصري عن نسبة (M + 2) - / M − لجزيئات PS VII في الأوراق مع المصير الأيضي ل 13C 6-Glucose. بعد الامتصاص ، يتم استقلابه عن طريق تحلل السكر لإنتاج acetyl-CoA مع نظيرين 13C. بالنظر إلى PS كمركب isoprenoid ، يستمر تخليقه الحيوي من acetyl-CoA إما عبر حمض الميفالونيك (MVA) أو مسار 2-C-methyl-D-erythritol-4-phosphate (MEP) (الشكل 4) ، مما يؤدي إلى تكوين (M + 2) - / M − PS VII. وبالتالي ، تحدد دراستنا الورقة على أنها العضو النهائي لتوليف PS VII في PPY.

الشكل 1: نسبة نظير 13C / 12C في جذور من أربع معالجات. (أ) كانت نسب نظائر 13C / 12C في جذور العلاجين 4 و 3 أعلى بكثير من تلك الخاصة بالعلاجين 1 و 2 ، مما يشير إلى أن 13C6-Glucose قد دخل بشكل كبير إلى الجذور من خلال تغذية الجذر. يمثل كل عمود المتوسط (± SE) لثلاث نسخ متماثلة. الحروف على الأعمدة تعني اختلافا كبيرا في نسبة نظير 13C / 12C في أربع معالجات (p < 0.05). اختصار: PS = باريس الصابونين. (ب) كشف مطياف الكتلة عالي الاستبانة ل PS VII (C51H82O21 ، 1030.5349) عن أيونه السالب مع وقت احتفاظ قدره 16.83 دقيقة. نظرا للوفرة الطبيعية ل 13C (بوزن جزيئي دقيق يبلغ 13.003 ، مقارنة ب 12C عند 12.000 ، تظهر مجموعة من قمم النظائر بما في ذلك (M−) ، بشكل رئيسي (M + 1) − ، (M + 2) − ، (M + 3) − و (M + 4) − ، في نفس وقت الاحتفاظ مثل ذروة الأيونات الجزيئية PS VII M−. كانت هذه القمم ناتجة بشكل أساسي عن تأين COOH− في ماء حمض الفورميك. يوضح مخطط شريطي مكبر قمم النظائر هذه. تم حساب نسب التيار الأيوني ل (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − ، و (M + 4) - / M − . من خلال تحليل التغيرات في هذه النسب ، يمكننا تتبع واستنتاج التخليق الحيوي للسابونين. هنا ، تمثل M − مناطق الذروة المجمعة للتيار الأيوني ل (M + COOH) - و M−. تم تعديل الشكل 1B من Wen et al.24. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 2: 13C6-سير عمل وضع العلامات على الجلوكوز وتكامل البيانات. تم تصنيف الشتلات عن طريق الرش والتغذية 0.2٪ 13C6-glucose لمدة 3 أيام ؛ بعد ذلك ، تم تحليل مقتطفات من كل عضو نظائريا بواسطة LC / MS و GC / IRMS ودمجها مع تكامل الذروة والبيانات للتحليل الخاص بالأعضاء لتخليق PS. أ: شكل تخطيطي يوضح تغذية الجلوكوز في الأعضاء المختلفة. كانت العلاجات 1-4 غير مغذية ، وتم تغذيتها في الأوراق ، وحزمة الأوعية الدموية الجذعية ، والجذور ، على التوالي. (ب) خطوات تحليل LC-MS للسائل المستخرج المصنوع من أنسجة PPY المجففة من خلال أداة طحن ونفخ النيتروجين. الاختصارات: LC / MS = كروماتوغرافيا سائلة - مطياف الكتلة ؛ PPY = باريسبوليفيلا فار. يونانينسيس (فرانش.) يد. -مزت.; PS = باريس سابونين. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
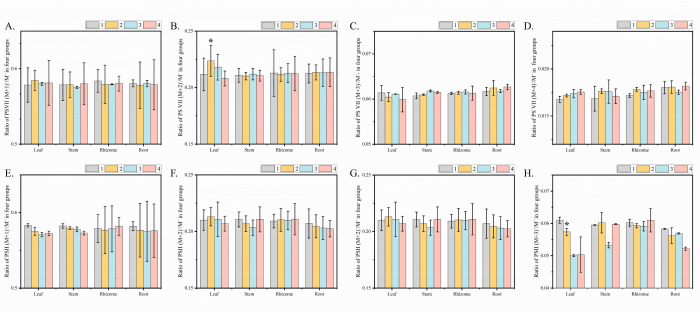
الشكل 3: تتبع التخليق الحيوي لسابونين باريس السابع وسابونين الثاني عبر 13C6-تغذية الجلوكوز لأعضاء النبات. (أ-د) نسبة جزيئات PS VII (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − ، (M + 4) - / M − في كل عضو من العلاجات الأربعة. زادت نسبة جزيئات PS VII (M + 2) - / M − بشكل ملحوظ في أوراق العلاج 2 والعلاج 3. في الجذع والجذر والجذمور ، لم تظهر نسبة جزيئات PS VII (M + 2) - / M − أي اختلافات واضحة بين العلاجات الأربعة. (ه-ح) نسبة جزيئات PS VII (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − ، (M + 4) - / M − في كل عضو من العلاجات الأربعة. بالمقارنة مع المعالجة 1 ، لم يكن لنسب جزيئات PS II (M + 2) - / M − في الأوراق أي فرق في المعالجة 2. في المعالجة 2 ، لا توجد اختلافات واضحة في الأوراق مقارنة بالمعالجة 1 لجزيئات PS II (M + 1) - / M − و (M + 4) - / M. انخفضت نسب جزيئات PS II (M + 3) - / M − في الأوراق مقارنة بالعلاج 1. باريس سابونين السابع ، PS السابع. يمثل كل عمود المتوسط (± SE) لثلاث نسخ متماثلة. أشارت "*" إلى اختلاف كبير عن العلاج غير المغذي (اختبار T عند P < 0.01). اختصار: PS = باريس الصابونين. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 4: وصف PS VII الناتج عن دخول الجلوكوز الخارجي 13C6 إلى مسار MVA. رسم تخطيطي لعملية التمثيل الغذائي لأنزيم الأسيتيل A المسمى 13C6-Glucose لتوليد جزيئات PS VII (M + 2) - / M − عبر مسار MVA. يظهر الكربون المسمى باللون الأحمر. الكربون غير المسمى رمادي. تحت تأثير تحلل السكر ، يتم شق 13C6-Glucose إلى جزيئين من أنزيم الأسيتيل A (M + 2) - ، والذي يولد بعد ذلك إيزوبنتنيل بيروفوسفات وثنائي ميثيل بروبينيل بيروفوسفات من خلال مسار MVA ، ثم يولد أتينول دوري عبر الجيل التحفيزي من geranylgeranyl pyrophosphate synthase ، farnesyl pyrophosphate synthase ، squalene synthase ، squalene epoxygenase ، cycloatenol synthase Cycloartenol ، ثم الأكسدة ، نزع الكربوكسيل ، الاختزال والتفاعلات الأخرى للحصول على الكوليسترول والكوليسترول من خلال سلسلة من إنزيمات السيتوكروم P450 ، جليكوزيل ترانسفيراز وسابونين فوروستانويد 26-O-β-glucosidase من التعديل المتأخر لتشكيل جزيئات PS VII التي تحتوي على اثنين من الكربون المصنف. (م + 2) - يشير إلى أن اثنين من الكربون COOH- يتأين عند هذه النقطة ، ويمكن اشتقاق عدد الملصقات لاثنين من الكربون باستخدام (M + 2) - / M −. وباستخدام البروتوكولات القياسية، يتم تحديد الجسم النظيري بشكل فردي ويتم تقسيم التيارات الأيونية للحصول على بيانات توسيم النظائر. قيمة M− مستقرة. اختصار: PS = باريس الصابونين. PS VII = باريس سابونين السابع ؛ MVA = مسار الميفالونات ؛ GPPS = جيرانيل جيرانيل بيروفوسفات سينسيز ؛ FPPS = فارنيسيل بيروفوسفات سينسيز ؛ SQS = سينسيز السكوالين ؛ SQE = السكوالين إيبوكسيجيناز ؛ CYPs = إنزيمات السيتوكروم P450 ؛ UGTs = ترانسفيراز الجلوكورونيك ؛ F26G = فوروستانويد سابونين 26-O-β-جلوكوزيداز. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
المناقشة
يتوقف التنفيذ الناجح لهذا البروتوكول على البحث الشامل في الخصائص الفسيولوجية للنبات والأنسجة والأعضاء والمستقلبات الثانوية. يضع نهج التصميم التجريبي المبين في البروتوكول أساسا قويا للتحقيق في مسارات التخليق الحيوي للمستقلبات الثانوية النباتية. العوامل الحاسمة في هذه التجربة هي (1) تحديد عمر الشتلات المعمرة و (2) اختيار التوقيت الصحيح للكشف عن النظائر. يتم تصنيف النباتات الطبية إلى معمرة وسنوية ، ولكل منها أنماط مختلفة من تخليق وتراكم الأيض الثانوي. تهدف هذه التجربة إلى توضيح الأعضاء الاصطناعية الأولية للمستقلبات الثانوية في النباتات الطبية من خلال تحليل معدل تخليق هذه الأيضات. لذلك ، من الضروري اختيار سنوات النمو والمراحل التي تتوافق مع أنماط ومعدلات التوليف هذه بعناية.
PPY هو نبات طبي معمر ، ويتراكم محتوى PS عاما بعد عام. ومع ذلك ، فقد تبين أن معدل تخليق PS لا يختلف عن معدل PPY22 للنباتات المعمرة. في الوقت نفسه ، فإن الحجم الأصغر للشتلات البالغة من العمر 2 عاما مقارنة بالشتلات القديمة يسهل الزراعة المائية. لذلك ، استخدمت هذه الدراسة شتلات PPY البالغة من العمر 2 سنة. هذا يضمن أن النباتات المختارة تظهر أعلى معدل لتخليق الأيض الثانوي. من الأهمية بمكان الاعتراف بالتباين في معدلات التوليف والانتقال للمستقلبات الثانوية عبر الأنواع المختلفة23. يتم تحديد الطول الأمثل لفترة الكشف عن الملصقات من خلال هذه المعدلات. تشير الأبحاث إلى أن محتوى السكر و PS في أوراق PPY ينخفض في غضون 3 أيام24 ، مما يشير إلى بطء عملية النقل ل PS بسبب وزنها الجزيئي الكبير ، ومن غير المرجح أن تكتمل خلال هذا الإطار الزمني. قد تؤدي مدة العلاج الأقصر من بضع ساعات إلى عدم كفاية التوليف وصعوبات الكشف عن PS 5,25 المسمى PS. على العكس من ذلك ، فإن تمديد العلاج إلى ما بعد 3 أيام يخاطر بنقل PS من الأوراق إلى جذمور ، مما قد يشوه النتائج التجريبية. لذلك ، يتم اختيار فترة وضع العلامات الوسيطة لمدة 3 أيام لتقليل تداخل الأعضاء - خاصة بالنسبة لطرق رش الأوراق ووضع العلامات على الجذور - وبالتالي ضمان نتائج تجريبية أكثر دقة.
أظهرت الدراسات السابقة لوضع العلامات على النظائر على Nicotiana tabacum26,27 و Brassica napus28 بنجاح امتصاص 13C6-Glucose والاندماج في الأنسجة النباتية. في بحثنا ، ركزنا على شتلات PPY المزروعة في الماء ، البالغة من العمر 2 عاما ، وتنفيذ 13C6-Glucose Feeding Therapy للأوراق والجذور والحزم الوعائية الجذعية ، جنبا إلى جنب مع علاجات التحكم غير التغذية. باستخدام اكتشاف LC-MS ، وجدنا أنه بحلول اليوم الثالث بعد وضع العلامات ، كانت نسبة 13C / 12C في الجذور من علاجات الحزمة الوعائية الجذعية وتغذية الجذور أعلى بكثير مما كانت عليه في عناصر التحكم غير التغذية ، مما يؤكد استيعاب 13C6-Glucose الفعال ونجاح نهج وضع العلامات لدينا (الشكل 2). في دراستنا ، قمنا في وقت واحد بتحليل أربعة أنواع من نسب ذروة الأيونات النظيرية لجزيئات PS VII و PS II في أربعة أعضاء مختلفة من PPY: (M + 1) - / M − ، (M + 2) - / M − ، (M + 3) - / M − ، و (M + 4) - / M−. الأهم من ذلك ، لاحظنا أنه في معالجة وسم الأوراق ، كانت نسب جزيء PS VII (M + 2) - / M − في الأوراق أعلى بشكل ملحوظ منها في المعالجة غير التغذوية. نسبة جزيئات PS VII (M + 2) - / M − في الأوراق تحت جذمور والمعالجة غير المغذية دون فرق (الشكل 3B). بالإضافة إلى ذلك ، مقارنة بالمعالجة غير المغذية ، كانت نسبة جزيء باريس سابونين II (PS II) (M + 2) - / M − في الأوراق تحت معالجة تغذية الأوراق دون فرق كبير ، وكانت نسب جزيئات PS II (M + 3) - / M − في الأوراق تحت معالجة تغذية الأوراق أقل (الشكل 3G). أظهرت معالجات وضع العلامات على الحزمة الجذعية والأوعية الدموية والجذور اختلافات كبيرة في نسب جزيئات PS II (M + 1) - / M − و (M + 4) - / M − في الجذور مقارنة بالعلاج غير المغذي (الشكل 3E ، H).
عند تكييف هذا النهج مع النباتات الطبية الأخرى ، من الأهمية بمكان اختيار مركبات العلامة المصممة خصيصا لسلائف المستقلبات الثانوية الأولية للنبات ، مما يضمن خصوصية العلامة. إذا تم تصنيع المركب المستهدف بشكل أساسي في الساق ، فيجب أن يكون مركب الوسم قادرا على نقله بكفاءة إلى الجذع واستقلابه فيه. إعادة تقييم مسار التوليف إذا كانت النسب النظيرية المتوقعة، مثل (M+2) −/M− ل PS VII، غير موجودة، مما يؤكد ملاءمة مركبات الوسم. قد يحتاج تركيز مركب الملصقات في محلول المغذيات إلى تعديل لضمان الامتصاص الكافي والاندماج في المركبات المستهدفة داخل العضو المطلوب. قد تتطلب معلمات الكشف LC-MS التحسين للكشف عن المستقلبات المحددة ذات الأهمية بشكل فعال. ويمكن أن يشمل ذلك ضبط إعدادات قياس الطيف الكتلي، مثل طريقة التأين، لتعزيز حساسية وخصوصية المركبات الفريدة للأنواع النباتية والأعضاء قيد التحقيق. إذا لم يتم الكشف عن نسب 13C / 12C في الجذور من حزمة الأوعية الدموية الجذعية وعلاجات وضع العلامات على الجذور ، فيجب زيادة تركيز 13C 6-Glucose في محلول المغذيات Hoagland ومدة وضع العلامات حتى يمكن تحقيق الكشف. يجب أن توجه طرق تغذية الجلوكوز 13C6-والتقنيات التحليلية التي تم إنشاؤها في هذه الدراسة تحليل وتفسير النتائج لتحديد أجهزة التوليف للمستقلبات الثانوية في النباتات الطبية المختلفة.
توفر علاجات التغذية وغير التغذية 13C6-Glucose للأوراق والجذور والحزم الوعائية الجذعية في هذه التجربة خصوصية أكبر في تحديد أعضاء تخليق المستقلبات الثانوية مقارنة بطرق وضع العلامات التقليدية على نظائر الكربون. ومع ذلك، لا تزال هناك تحديات. أحد القيود الرئيسية هو عدم وجود إطار زمني واحد للكشف عن الملصقات يناسب الجميع مناسب لجميع النباتات الطبية. يؤدي اختيار الإطار الزمني الأمثل إلى تحسين فعالية وضع العلامات. بالإضافة إلى ذلك، يؤدي استخدام النسب لتحليل النتائج إلى تعقيد تمايز مواقع المجموعات الوظيفية في المتشاكلات الكبيرة والمعقدة. وبالتالي ، ينصح بإجراء مراجعة شاملة للأدبيات والتجارب الأولية قبل استخدام هذه المنهجية. لا تضمن هذه الاستراتيجية الدقة والكفاءة فحسب ، بل لها أيضا آثار كبيرة على بيولوجيا النبات والصيدلة. يسمح دمج هذه الطريقة مع التحليل الطيفي بالرنين المغناطيسي النووي ، وهي تقنية رائدة لتحليل هياكل المركبات العضوية ، بتحديد دقيق لمواقع وضع العلامات على 13درجة مئوية. تمهد هذه الطريقة الطريق لاستكشاف مسارات التخليق الحيوي للمستقلبات الثانوية النباتية ، وتقدم نهجا مفصلا وفعالا لتحديد خصوصية الأعضاء في تخليق المستقلبات الثانوية في النباتات الطبية.
الإفصاحات
يعلن أصحاب البلاغ عدم وجود مصالح مالية متنافسة.
شكر وتقدير
تم تمويل هذا العمل من قبل المؤسسة الوطنية للعلوم الطبيعية لبرنامج الشباب الصيني (رقم 82304670).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.1٪ ماء حمض الفورميك | مصنع الكاشف الكيميائي تشنغدو كيلونج | 44890 | |
| 13 < / sup>C6< / sub> مسحوق الجلوكوز | MERCK | 110187-42-3 | |
| مصنع الكاشف الكيميائي Acetonitrile | Chengdu Kelong | 44890 | |
| AUTOSAMPLER قوارير شركة | Biosharp للتكنولوجيا الحيوية | 44866 | |
| BEH C18 عمود | ووترز ، ميلفور ، ماساتشوستس | 1.7 & مو ؛ م ، 2.1 * 100 مم | |
| CNC بالموجات فوق الصوتية الأنظف | كونشان الموجات فوق الصوتية أداة المحدودة | KQ-600DE | |
| Compound DiscovererTM البرمجيات | Thermo Scientific ، Fremont ، CA | 3 | |
| Compound DiscovererTM البرمجيات ؛ | Thermo Scientific ، Fremont ، CA | 3 | |
| فرن تجفيف | DHG-9146A | ||
| الميزان التحليلي الإلكتروني | Sedolis Scientific Instruments Beijing Co.، Ltd | SOP | |
| Ethanol ؛ | مصنع الكاشف الكيميائي Chengdu Kelong | 44955 | |
| مطحنة سريعة عينة أوتوماتيكية بالكامل | Shanghai Jingxin Technology | Tissuelyser-48 | |
| كروماتوغرافيا الغاز - نسبة النظائر المستقرة مطياف الكتلة | Thermo Fisher | Delta V Advantage | |
| Hoagland حل | Sigma-Aldrich | H2295-1L | |
| الزراعة المائية | JRD | 1020421 | |
| برنامج Isodat | Thermo Fisher Scientific | 3 | |
| الكروماتوغرافيا السائلة قياس الطيف الكتلي عالي الدقة | Agilent Technology | Agilent 1260 -6120 | |
| أداة تصنيع النيتروجين | PEAK SCIENTIFIC | Genius SQ 24 | |
| مرشح الطور العضوي | Tianjin Jinteng Experimental Equipment Co.، Ltd | 44890 | |
| مضخة الأكسجين | Magic Dragon | MFL | |
| Quantum sensor | Highpoint | UPRtek | |
| Scalpel | Handskit | 11-23 | |
| الرش يمكن | CHUSHI | WJ-001 | |
| Xcalibur البرمجيات | Thermo Fisher Scientific | 4.2 |
المراجع
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
إعادة الطباعة والأذونات
الوسوم
