يقدم هذا البروتوكول دليلا تفصيليا للباحثين لإجراء إجراء انسداد الشريان الدماغي الأوسط على الفئران باستخدام طريقة الشريان السباتي الخارجي Longa المعدلة. تهدف التعديلات المقدمة في هذه المقالة إلى زيادة دقة انسداد الشريان الدماغي الأوسط وضمان إعادة التروية الكاملة.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
تحسين طريقة انسداد الشريان الدماغي الأوسط لونجا لإعادة التروية الكاملة
في هذه المقالة
ملخص
الملخص
يعمل نموذج انسداد الشريان الدماغي الأوسط كنموذج حيواني أساسي لدراسة السكتة الدماغية. على الرغم من استخدامه في البحث لأكثر من ثلاثة عقود ، إلا أن توحيده لا يزال غير كاف. ويشكل هذا الإجراء، الذي يتم إجراؤه في الغالب على الجرذان والفئران، تحديات بسبب طبيعة الفئران الأصغر والأكثر هشاشة. على عكس طريقة الشريان السباتي الشائعة Koizumi ، فإن الشريان السباتي الخارجي Longa هو نموذج السكتة الدماغية الوحيد داخل اللمعة الذي يضمن إعادة التروية الكاملة بعد نقص التروية. يحمل هذا الجانب أهمية حاسمة للدراسات التي تبحث في ظواهر التروية. تضمن التعديلات الجراحية الموضحة في هذه المقالة استمرار تدفق الدم من الشريان السباتي المشترك طوال المرحلة الإقفارية وبعد بداية التروية. الهدف من هذه التعديلات هو انسداد الشريان الدماغي الأوسط بشكل انتقائي عن طريق الحفاظ على التروية دون انقطاع في الفروع القريبة من الشريان الدماغي الأوسط خلال فترة نقص التروية. علاوة على ذلك ، فإن بداية إعادة التروية مفاجئة ويمكن التحكم فيها بدقة ، وبالتالي نمذجة استئصال الخثرة داخل الأوعية الدموية في الطب البشري بشكل أكثر دقة. هدفنا من تقديم مقالة الفيديو الشاملة هذه هو تسهيل تدريب الجراحين الجدد وتعزيز توحيد الإجراءات الجراحية داخل المجتمع العلمي.
المقدمة
تصنف السكتة الدماغية كسبب رئيسي ثان للوفاة والسبب الرئيسي الثالث للوفاة والعجزمجتمعين 1. من خلال سببها ، يمكن أن تكون السكتة الدماغية إقفارية أو نزفية ، مع كون السكتة الدماغية الإقفارية أكثر انتشارا في الممارسة السريرية. تنشأ السكتة الدماغية الإقفارية من انسداد في الشريان الذي يمد أنسجة المخ بالدم ، مما يؤدي إلى نقص التروية وموت الخلايا والالتهابات. منذ ظهور علاجات إعادة التروية مثل انحلال الخثرة واستئصال الخثرة الميكانيكية ، تم إحراز تقدم كبير في علاج السكتة الدماغية. ومع ذلك ، فإن جميع علاجات إعادة التروية تحمل خطر تفاقم حالة المريض عن طريق التسبب في ما يشار إليه عادة باسم إصابة إعادة التروية2. لا تزال الآلية الدقيقة لإصابة إعادة التروية غير واضحة ، والأمر متروك للدراسات قبل السريرية لتحديد الأسباب المحتملة والتدابير الوقائية. لهذا الغرض ، يصبح تطوير نموذج حيواني ذي صلة لإصابة التروية التي تلي السكتة الدماغية الإقفارية أمرا بالغ الأهمية.
انسداد الشريان الدماغي الأوسط (MCAO) هو النموذج الحيواني الأكثر استخداما لدراسة السكتة الدماغية. يتم إجراؤه في الغالب في القوارض وله العديد من المتغيرات المختلفة الموصوفة في الأدبيات العلمية حتى الآن 3,4. يختلف النوعان الرئيسيان ، Koizumi و Longa ، المعروفان باسم الشريان السباتي المشترك (CCA) ومتغيرات الشريان السباتي الخارجي (ECA) ، تقنيا حسب موقع بضع الشرايين لإدخال الخيوط 5,6. في مقالتنا الأخيرة ، من خلال مراقبة التروية الوعائية في الجسم الحي ، أظهرنا أن طريقة Longa فقط هي التي يمكن اعتبارها حقا نموذج نقص تروية الدماغ / إعادة التروية7. يتضمن الإجراء إدخال الفتيل في ECA ، ودفعه عبر ICA ، وتثبيته عند نقطة التفرع من الشريان الدماغي الأوسط (MCA) للحث على نقص تروية أنسجة المخ. بعد فترة محددة مسبقا من نقص التروية ، يسمح سحب الفتيل بإعادة التروية ، ومحاكاة نقص تروية الدماغ العابر. بعد بداية السكتة الدماغية ، غالبا ما يكون متغير النتيجة الأولية المستخدم في البحث هو حجم الآفة المحتشدة ، والتي يمكن قياسها إما باستخدام الأنسجة خارج الجسم الحي أو في مسح الدماغ في الجسم الحي. تدور التحديات في نماذج MCAO حول قابلية التكاثر المنخفضة المنسوبة إلى الاختلافات بين المتغيرات وبين المشغلين وبين الموضوعات ، حيث تشكل الأخيرة قيودا كبيرة في أبحاث السكتة الدماغية قبل السريرية4.
علاوة على ذلك ، فإن المناطق المحتشدة التي تتبع MCAO في القوارض ضخمة بالنسبة لحجم دماغ القوارض. بالإضافة إلى ذلك ، غالبا ما يتم تجنيد المناطق الخلفية الحصينية من الدماغ في حجم الاحتشاء على الرغم من أن تلك المناطق تعتمد بشكل أساسي على تدفق الدم من الشريان الدماغي الخلفي (PCA) ، وليس MCA8. كما هو الحال في كل من طرق Koizumi و Longa الموصوفة في الأدبيات ، يتم الاحتفاظ ب CCA مرتبطا خلال فترة نقص التروية بسبب المباح غير المكتمل لدائرة ويليس في الفئران ، مما يؤدي إلى تحريض نقص التروية في منطقة أوسع بكثير من المقصود5،6،9. حتى في الطرق التي يتم فيها إعادة فتح CCA أو إصلاحه بعد فترة نقص التروية ، فإن 30-60 دقيقة المعتادة من نقص التروية تؤدي إلى إصابة أنسجة لا رجعة فيها في المناطق غير MCA10. علاوة على ذلك ، على عكس التوقعات ، أظهرت الأبحاث السابقة أن طول طلاء السيليكون للخيوط ليس له أي تأثير على حجم الآفة11. ومع ذلك ، تم تناول اختيار طول طلاء السيليكون للخيوط فقط في النماذج ذات CCA المربوط خلال فترة الانسداد.
كان الهدف من هذه الطريقة هو تعديل طريقة Longa MCAO في الفئران لتمكين تدفق الدم دون انقطاع من CCA خلال فترة نقص التروية ، وبالتالي زيادة انتقائية MCAO ، وكذلك ضمان إعادة التروية الكاملة للمنطقة المحتشدة بعد العملية. ستفيد هذه التعديلات بشكل كبير الدراسات الطولية التي تبحث في إصابة نقص التروية في الفئران عن طريق خفض معدل الوفيات وتقليل التباين بين الموضوعات.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت الموافقة على جميع مناولة وإجراءاتها من قبل لجنة ترخيص الأخلاقيات التابعة لكلية الطب بجامعة زغرب ولجنة الأخلاقيات لحماية المستخدمة للأغراض العلمية التابعة لوزارة الزراعة في جمهورية كرواتيا. تم إجراء الإجراءات التجريبية وفقا لقانون حماية الكرواتي (NN 102/17 ، 32/19) ، والتعديلات على قانون حماية (NN 37/13) والمبادئ التوجيهية لحماية المستخدمة للأغراض العلمية (NN 55/13) والتي تتماشى مع الدليل الأوروبي لرعاية واستخدام المختبر (التوجيه 2010/63 / EU).
1. إعداد وموقع الجراحة
- ضع في صندوق خروج المغلوب وحث التخدير باستخدام حجم 5٪ من الأيزوفلوران في خليط الأكسجين / النيتروجين (نسبة 1: 2).
- بعد فحص حالة وعي وتردد التنفس بصريا ، قم بإحضاره إلى مقياس المختبر ووزنه.
- تحقق من المنعكس عن طريق الضغط على الجلد بين الأصابع للطرف السفلي لضمان عمق التخدير المناسب.
- ضع على طاولة العمليات الساخنة وأحضر أنفه إلى قناع التخدير. اضبط درجة حرارة طاولة التشغيل الأولية على 36 درجة مئوية واضبطها للحفاظ على درجة حرارة جسم عند 37 درجة مئوية (تم قياسها عبر مسبار المستقيم الذي تم إدخاله في خطوات لاحقة). خلال جميع الخطوات الأخرى ، اضبط جزء حجم الأيزوفلوران للحفاظ على معدل التنفس للحيوان عند 100 نفس / دقيقة.
ملاحظة: يجب تطهير جميع الأسطح والمواد التي تتلامس مباشرة مع جيدا قبل الإجراء. - ضع مرهم العين على عيون لحمايتهم من الجفاف وغاز الأيزوفلوران.
- اقلب على ظهره ومد رقبته عن طريق وضع وسادة صغيرة مصنوعة من شريط جراحي تحته.
- ثبت أطراف في مكانها باستخدام شريط جراحي. احرص على عدم تمديد الأطراف الأمامية أكثر من اللازم حتى لا تتسبب في خلع مفصل الكتف عن غير قصد.
- قم بتشحيم مسبار المستقيم باستخدام هلام البترول الأبيض وأدخله في المستقيم لقياس درجة حرارة الجسم بشكل مستمر. ثبت المسبار في مكانه مع الذيل باستخدام شريط جراحي.
- تطبيق حقنة قبل الجراحة من المياه المالحة والبوبرينورفين (0.5 ملغ / كغ) داخل الصفاق للحفاظ على رطبا بشكل جيد وتحت تسكين أثناء العملية.
- حلق فراء في منطقة الرقبة باستخدام ماكينة قص اللاسلكية. جمع كل الفراء حليق باستخدام قطع من الشريط الجراحي. بالإضافة إلى ذلك ، احلق المنطقة بشفرة حلاقة لجعلها خالية تماما من الفراء.
- اختر خيوط MCAO بناء على وزن المقاس و / أو عمره. أخرجه من الحاوية وضعه في طبق بتري في مكان مرئي. ضع قطرة من المحلول الملحي على جزء السيليكون من الفتيل للحفاظ عليه نظيفا وخاليا من الغبار.
ملاحظة: يجب اختيار سمك طلاء السيليكون للخيوط وفقا للتوصيات الرسمية للشركة المصنعة في حالة الماوس البالغ من العمر 12-16 أسبوعا. بالإضافة إلى ذلك ، يجب التخطيط بعناية لطول طلاء السيليكون مسبقا ، اعتمادا على حجم منطقة الري المراد إغلاقها (انظر المناقشة). - ضع ستارة جراحية نظيفة على طاولة العمليات.
- ضع قطرة من Betadine على جلد الحليق. استخدم قطعة قطن لفرك المطهر في الجلد بطريقة دائرية من الداخل إلى الخارج. بعد ذلك ، افعل الشيء نفسه باستخدام قطعة قطن مبللة بالإيثانول. كرر هذه الخطوة 3 مرات مع زوج جديد من مسحات القطن المعقمة لكل تكرار.
- ضع القليل من هلام يدوكائين على المنطقة المطهرة من موقع الشق المستقبلي لتسكين الجرح الموضعي.
2. جراحة تحريض نقص التروية
- قم بعمل شق أولي على الجلد المطهر باستخدام مشرط. حافظ على عدد ضربات شق الجلد عند الحد الأدنى لتسهيل التئام الجروح الجراحية.
ملاحظة: يجب أن تكون جميع الأدوات قد تم تعقيمها مسبقا. يجب على القارئ الرجوع إلى إرشاداتهم المؤسسية لاستخدام القفازات المعقمة أو الجراحية. - باستخدام ملقط من النوع 7 و 5 ، قم بتمزيق اللفافة السطحية وفصل الغدد اللعابية عن الأنسجة الكامنة.
ملاحظة: تقدم دائما بالملقط المغلق وقم بتمديده أثناء الابتعاد لدفع الأنسجة بعيدا. بهذه الطريقة ، يمكن اجتياز المساحات التشريحية بأقل قدر من صدمة الأنسجة. - ضع مبعثر السلك في موضعه الأولي مع التأكد من أن الغدد اللعابية لا تتداخل مع الخطوات اللاحقة.
- قم بإزالة لفافة الرقبة العميقة باستخدام ملقط من النوع 7 وافصل العضلات القصية الترقوية الخشائية من المنطقة السباتية لإعادة وضع المبعد.
- أعد وضع المبعثر للوصول إلى أسفل العضلات القصية الترقوية الخشائية لتمكين الوصول إلى المنطقة السباتية.
- استئصال العضلة اللامية للسماح بنهج مرئي واضح وأسهل للمنطقة السباتية.
- حرر الشريان السباتي وفروعه من الوريد السباتي والعصب المبهم، اللذين يتماسكان معا في اللفافة السباتية.
ملاحظة: يجب إزالة هذه اللفافة بعناية لتجنب إصابة العصب المبهم أو التسبب في أي نزيف كبير.- اضغط على اللفافة السباتية على الجانب الجانبي من ثالوث الشريان السباتي واسحبها برفق بشكل جانبي للتعرف بصريا على الشريان والعصب والوريد وجميع فروع الأوعية الدموية المحيطة.
- أثناء سحب اللفافة بشكل جانبي ، باستخدام ملقط من النوع 5 ، افصل CCA عن العصب المجاور والوريد حتى نقطة التفرع والوريد الدرقي العلوي ، الذي يعبر فوق CCA.
- افصل الجزء السفلي من CCA تماما عن الأنسجة واللفافة الكامنة ، باستخدام ملقط منحني من النوع 7 ، مع التأكد من أنه جاهز للتثبيت في الخطوات المستقبلية.
- عند المضي قدما في الجمجمة في المنطقة فوق نقطة تفرع CCA ، قم بفتح اللفافة السباتية باستخدام ملقطين.
- وبالمثل ، اسحب الطرف السائب من اللفافة السباتية وسطيا وجانبيا لفصل ECA والشريان السباتي الداخلي (ICA) بدقة عن اللفافة والأنسجة المحيطة ، على التوالي.
- اضبط ECA و ICA خاليا من الأنسجة الكامنة باستخدام ملقط منحني من النوع 7.
- مع إعداد CCA بعناية مع فرعيه الخاصين ، ارفع ECA باستخدام ملقط منحني من النوع 7 وقم بتثبيته بملقط ذاتي الإغلاق من النوع N0.
- اخفض ملقط الإغلاق الذاتي من النوع N0 بعناية على طاولة العمليات.
ملاحظة: لإعادة وضع نقطة التثبيت الخاصة ب ECA ، من الضروري أحيانا تحرير القبضة قليلا ودفع نقطة تفرع ECA ذيليا. في هذه المرحلة ، من المهم التأكد من بقاء أكثر من 1 مم من ECA بين لقط ECA ونقطة التفرع. - مع تثبيت ECA وتثبيته بإحكام باستخدام ملاقط من النوع N0 ، أدخل خيطين حريريين مضفرين خلف ECA.
ملاحظة: الخيط القحفي سيجعل عقدة الربط ويجب وضعه في الجمجمة من موقع التثبيت. - اربط الخيط الجمجمة تماما ، لأنه دائم ، وقم بقص الخيط الزائد بعيدا باستخدام المقص.
- اربط الخيط الذيلي في عقدة تأمين فضفاضة.
ملاحظة: يجب وضعه بالقرب من نقطة تفرع ECA وإبقائه فضفاضا حتى يمر خيط MCAO. - باستخدام microclips الأوعية الدموية ، قم بتثبيت CCA و ICA لمنع النزيف بعد بضع الشرايين.
ملاحظة: من الأهمية بمكان التأكد من أن المشبك الصغير المطبق على CCA له قبضة قوية بما يكفي لأن CCA هو شريان نابض عالي الإنتاجية ، ويمكن أن يؤدي عدم القيام بذلك إلى نزيف غزير وموت في الخطوات اللاحقة. - باستخدام مقص الزنبرك الصغير ، قم بعمل بضع شريان صغير أسفل موقع تثبيت ECA مباشرة.
ملاحظة: يجب أن يكون بضع الشرايين كبيرا بما يكفي لدخول جزء السيليكون من الفتيل ولكن ليس أكبر من نصف محيط ECA حتى لا يضر بالتوتر الذي يحتفظ به ملقط N0 من النوع. - بزاوية مطابقة لزاوية ECA ، أدخل الفتيل في موقع بضع الشرايين في اتجاه قريب من CCA ، مرورا بعقدة التثبيت المفكوكة في الموقع المتفرع ل ECA والالتصاق بتجويف CCA مع الفتيل.
- شد عقدة التثبيت حول جزء السيليكون من الفتيل.
ملاحظة: هناك حاجة إلى عناية كبيرة في هذه المرحلة حيث يميل الفتيل إلى الانزلاق من ECA في منتصف المناورة الأخيرة ، وإعادته في تلك المرحلة أمر صعب للغاية. - افتح مشبك ICA الصغير بعناية وقم بإزالته.
- مع إدخال الفتيل جزئيا في ECA وتثبيته لأسفل ، قم بإجراء بضع شريان كامل وبالتالي فك جذع ECA مع خيوط MCAO بالداخل. في هذه المرحلة ، حرر ملقط الإغلاق الذاتي من النوع N0 وقم بإزالته.
- مع مجموعة واحدة من ملاقط من النوع 5 ، اضغط بقوة على جذع ECA وارفعه قليلا. أثناء التمسك بالخيوط التي تم إدخالها جزئيا بملقط آخر ، قم بخفض جذع ECA وسحبه برفق لتوجيه الطرف الداخلي للخيوط نحو ICA. لا تضغط أبدا على جزء السيليكون من الفتيل.
- مع تمسك الملقط بالخيوط ، ادفع الفتيل ببطء عبر ICA نحو دائرة الوصايا.
ملاحظة: نقطة التفرع الأولى من ICA هي أيضا النقطة الوحيدة التي يمكن أن يفوت فيها المشغل نقطة تفرع MCA المطلوبة. لذلك ، من الضروري وجود زاوية جانبية طفيفة للتقدم لتوجيه الفتيل إلى نقطة تفرع MCA. مع الزاوية الجانبية الطفيفة للتقدم ، تنحني الفتيل بعيدا عن الشريان الجناحية (PPA) وتجعل الطرف المتقدم أكثر عرضة للدخول إلى دائرة ويليس (الشكل 1).
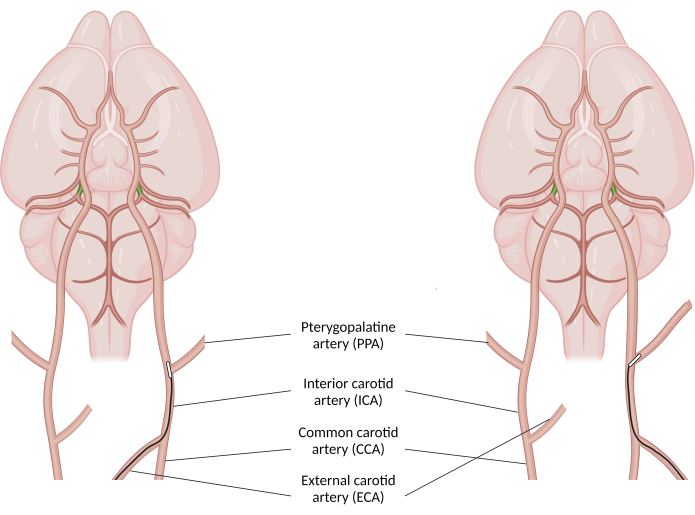
الشكل 1: رسم توضيحي لتقدم خيوط انسداد الشريان الدماغي الأوسط بعد نقطة تفرع الشريان الجناحية الحنكية. يتم تحقيق التقدم المناسب للخيوط (على اليسار) من خلال توجيه خيوط MCAO بطريقة تجعلها تتراجع عن الجدار الجانبي ل ICA وتنحني بعيدا عن نقطة تفرع PPA. يمكن أن يؤدي عدم القيام بذلك (على اليمين) إلى دخول خيوط إلى PPA وعدم التسبب في السكتة الدماغية. في الحالة الأخيرة ، لن يكون الفتيل قادرا على التقدم بقدر ما ينبغي ويجب على الجراح سحب الفتيل حتى تصبح نهايته مرئية عند نقطة تفرع ICA والبدء في دفع الفتيل مرة أخرى. تمثل الشرايين ذات اللون الأخضر الشرايين المتصلة الخلفية (PcomA) ، ومعظمها غير حاصل على براءة اختراع في الفئران. تم إنشاؤها باستخدام BioRender.com. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
- تقدم ببطء خيوط MCAO من خلال دائرة ويليس حتى يتم الشعور بزيادة مفاجئة في المقاومة.
ملاحظة: في هذه المرحلة ، من المهم ملاحظة الطول المتبقي للخيوط. يجب أن يستمر الفتيل دون عناء على الأقل 7 مم من نقطة تفرع ICA في ماوس بالغ. - شد عقدة التثبيت لضمان عدم إزاحة الفتيل أثناء نقص التروية.
- قم بإزالة مقطع CCA ولاحظ الوقت.
ملاحظة: هذا يمثل بداية بداية نقص التروية. - ضع الطرف السائب لخيوط MCAO في الأخدود بين المثلث السباتي والعضلة القصية الترقوية الخشائية المماثلة حتى لا تبرز من الجرح الجراحي.
- قم بإزالة السلك المبعثر واجعل حواف الجرح الجراحي أقرب إلى بعضها البعض. دع موقع الجراحة يستقر لبضع ثوان حتى يعود النسيج إلى موضعه التشريحي.
- أغلق الجرح الجراحي باستخدام شريط إغلاق الجرح لتسهيل إعادة فتح الجرح بشكل أسرع بعد فترة نقص التروية.
ملاحظة: إذا رغب الباحث في ترك يستيقظ خلال فترة نقص التروية ، يوصى بخياطة الجرح لمنع إعادة فتح الجرح في وقت غير مناسب.
3. فترة نقص التروية
- التحقق من نجاح الجراحة باستخدام التصوير بالرنين المغناطيسي أو بعض طرق قياس التروية الكمية الأخرى.
ملاحظة: في حالة إجراء فحص التصوير بالرنين المغناطيسي ، يجب أن يظهر التصوير المرجح بالتروية (PWI) نقص التروية الحرج في منطقة MCA الواسعة ويجب أن يحدد التصوير المرجح بالانتشار (DWI) موقع انخفاض معامل الانتشار الظاهر (ADC) بسبب وذمة الخلية. - ضع في قفص نظيف حتى تنتهي فترة نقص التروية.
4. جراحة سحب الشعيرة
- قبل 5 دقائق تقريبا من انتهاء وقت نقص التروية المخصص ، ضع وقم بتثبيته على طاولة العمليات مرة أخرى.
- قم بإزالة إغلاق الجرح الشريطي وأعد فتح الجرح الجراحي باستخدام مسحب الأسلاك.
- حرر الطرف السائب لخيوط MCAO من الأنسجة المحيطة ونهايات خيط عقدة التثبيت.
- باستخدام ملقط من النوع N0 ، قم بقرص وسحب حافة جذع ECA بطنيا لوضع التوتر عليه. خفض بعناية ملقط القرص لأسفل ، على غرار الإجراء الجراحي الأول.
ملاحظة: يجب على المشغل تجنب قرص عقدة التثبيت ، لأن ذلك سيجعل العقدة غير قادرة على الفك. - المشبك CCA مرة أخرى مع مقطع الأوعية الدموية الدقيقة.
- باستخدام ملقط من النوع 5 ، قم بفك عقدة التثبيت لتمكين سحب الفتيل.
ملاحظة: أفضل طريقة لبدء فك العقدة هي الاستمرار في قرصها حتى تنفصل إلى أجزاء فردية ثم دفع أطراف الخيط نحو العقدة. - اسحب خيوط MCAO ببطء حتى يبدأ جزء السيليكون في الخروج من جذع ECA. شد عقدة التثبيت قليلا للتحضير لسحب الفتيل بالكامل.
- عندما تكون قريبا من نهاية السيليكون للخيوط ، اربط عقدة التثبيت بحيث تدفع خيوط MCAO للخارج وتغلق جذع ECA في مناورة واحدة. شد العقدة تماما بعد انزلاق الفتيل.
- افتح وأزل ملقط القرص مع مشبك CCA.
ملاحظة: هذا يمثل نهاية فترة نقص التروية وبداية عملية إعادة التروية. - قم بإزالة السلك وجمع حواف الجرح الجراحي معا مرة أخرى.
- خياطة الجرح الجراحي بدءا من المحيط ، وإغلاق الجرح تماما دون ظهور أي نسيج أساسي.
ملاحظة: يعتمد عدد الغرز المطلوبة على حجم الجرح الجراحي. - تنظيف وتطهير موقع الجراحة باستخدام مناديل الكحول المحمر.
5. رعاية ما بعد الجراحة
- ضع في قفص نظيف واتركه يستيقظ تلقائيا من التخدير.
- ضع الطعام المحبب في قاع القفص لتسهيل الوصول إليه. تليين الكريات الغذائية باستخدام مياه الشرب. املأ طبق بتري الصغير بماء الشرب وأحضره إلى أرضية القفص أيضا.
- في ال 48 ساعة التالية، يتم حقن 0.25 مل محلول ملحي مع البوبرينورفين (0.5 ملغ/كغ) كل 24 ساعة داخل الصفاق.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
يمكن أن تقدم فحوصات التصوير بالرنين المغناطيسي أثناء العملية الجراحية أو بعد الجراحة ، وتحديدا التصوير المرجح بالتروية (PWI) و / أو التصوير المرجح بالانتشار (DWI) (الشكل 2) دليلا قاطعا على نجاح الإجراء. يظهر PWI أثناء العملية نقص تروية حرج في منطقة MCA المماثلة مما يؤكد أن وضع الفتيل أدى إلى انسداد كامل. يظهر PWI بعد العملية الجراحية لإجراء ناجح فرط التروية في قلب الآفة ، بالإضافة إلى درجة معينة من إعادة التروية على حدود منطقة MCA. تتوافق آفات DWI أثناء العملية مع المناطق الإقفارية المرصودة ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
MCAO هو إجراء متطلب للغاية للمشغل وعمل موهن للحيوان. لهذا السبب ، من الأهمية بمكان أن يكون لدى الباحثين إجراء تشغيل قياسي يقلل من شدة السكتة الدماغية ، ويقلل من الفشل الإجرائي ، ويحسن رفاهية بعد الإجراء. يسلط بروتوكول MCAO هذا الضوء على بعض الجوانب الرئيسية التي يجب مراعاتها عند إجراء هذا الإجراء على الماوس.
يؤثر اختيار خيوط MCAO على حجم وموقع آفة السكتة الدماغية المستحثة ، وبالتالي فهي خطوة حاسمة في هذا الإجراء11. حققت الخيوط المطلية ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للكشف عنه. لا ينتمي المؤلفون إلى الأسماء التجارية والعلامات التجارية المذكورة في هذا العمل.
شكر وتقدير
تم تمويل هذا العمل من قبل مشروع مؤسسة العلوم الكرواتية BRADISCHEMIA (UIP-2017-05-8082) ؛ GA KK01.1.1.01.0007 بتمويل من الاتحاد الأوروبي من خلال الصندوق الأوروبي للتنمية الإقليمية ومن الاتحاد الأوروبي من خلال الصندوق الأوروبي للتنمية الإقليمية بموجب اتفاقية المنحة رقم. KK.01.1.1.07.0071 ، مشروع "SineMozak. تم دعم عمل طلاب الدكتوراه روك إيستر ومارتا بونغراك بشكل كامل من خلال "مشروع التطوير الوظيفي للباحثين الشباب - تدريب طلاب الدكتوراه" التابع لمؤسسة العلوم الكرواتية بتمويل من الاتحاد الأوروبي من الصندوق الاجتماعي الأوروبي. تم تصوير الإجراء باستخدام هاتف ذكي يعمل بنظام Android مثبت على مجهر جراحي باستخدام حامل كاميرا عام. تم تحرير مواد الفيديو ، وتم تسجيل التعليق الصوتي باستخدام محرر فيديو Wondershare Filmora.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| محلول جلدي بيتادين 10 جم / 100 مل | قلويد Skopje | N / A | |
| خياطة حرير مضفر | أدوات العلوم الدقيقة | 18020-60 | |
| خياطة دافيلون 5/0 DS16 | B. براون | C0936154 | |
| دولوكاين 20 مجم / جم جل | Jadran-Galenski Laboratorij | N / A | |
| Dumont # 5 ملقط | أدوات العلوم الدقيقة | 11251-20 | 2 قطعة |
| Dumont # 7 ملقط | أدوات العلوم الدقيقة | 11271-30 | |
| ملقط Dumont N0 ذاتي الإغلاق | أدوات العلوم الدقيقة | 11480-11 | |
| شريط جراحي Durapore 1.25 سم × 9.1 م | 3M | 7100057169 | |
| شريط جراحي Durapore 2.5 سم × 9.1 م | 3M | 7100057168 | |
| ترموستات خارجي | Petnap | 1012536 | |
| حاملات إبرة هالسي | أدوات العلوم الدقيقة | 12500-12 | |
| معقم حبة ساخنة | أدوات العلوم | الدقيقة 18000-50 | |
| مقص قزحية | أدوات العلوم الدقيقة | 14060-10 | |
| Isoflurane USP | Piramal للعناية الحرجة | N / A | |
| جهاز مراقبة دوبلر بالليزر | Moor | MOORVMS-LDF2 | |
| وسادة حرارية للحيوانات الأليفة | Petnap | 1012525 | |
| مقص الربيع Micro Vannas | أدوات العلوم الدقيقة | 15000-00 | |
| ضام صغير كوليبري | أدوات العلوم الدقيقة | 17000-01 | |
| مرهم العين Recugel | Bausch & Lomb | N / A | |
| S & T B-1 السفينة المشبك الصغير | أدوات العلوم الدقيقة | 00396-01 | 2 قطعة |
| S & T المشبك الصغير تطبيق ملقط | أدوات العلوم الدقيقة | 00071-14 | |
| شوارتز ميكرو سيرريفين | أدوات العلوم الدقيقة | 18052-01 | |
| Stemi DV4 بقعة مجهر ستيريو | زايس | 000000-1018-453 | |
| Steri-Strip إغلاق الجلد اللاصق المقوى 3 مم × 75 مم | 3M | 7100236545 | |
| ملقط الأنسجة المستقيمة | أدوات العلوم الدقيقة | 11023-10 | |
| ذراع الحامل | SZX أوليمبوس | SZ2-STS | |
| Tec III 300 سلسلة معايرة المرذاذ | المرذاذ مبيعات وخدمة شركة | حامل عالمي | |
| من النوع 2 | أوليمبوس | SZ2-STU2 | |
| VetFlo حامل تخدير سداسي القنوات | كينت Scientific | VetFlo-1225 | معدل لخلط O2 / N2 |
المراجع
- Feigin, V. L., et al. regional, and national burden of stroke and its risk factors, 1990-2019: a systematic analysis for the Global Burden of Disease Study 2019. The Lancet. Neurology. 20 (10), 1-26 (2021).
- Bai, J., Lyden, P. D. Revisiting cerebral postischemic reperfusion injury: New insights in understanding reperfusion failure, hemorrhage, and edema. Int J Stroke. 10 (2), 143-152 (2015).
- Sommer, C. J. Ischemic stroke: experimental models and reality. Acta Neuropathol. 133 (2), 245-261 (2017).
- Hill, J. W., Nemoto, E. M. Transient middle cerebral artery occlusion with complete reperfusion in spontaneously hypertensive rats. MethodsX. 1, 283-291 (2014).
- Koizumi, J., Yoshida, Y., Nakazawa, T., Ooneda, G. Experimental studies of ischemic brain edema. Nosotchu. 8 (1), 1-8 (1986).
- Longa, E. Z., Weinstein, P. R., Carlson, S., Cummins, R. Reversible middle cerebral artery occlusion without craniectomy in rats. Stroke. 20 (1), 84-91 (1989).
- Justić, H., et al. Redefining the Koizumi model of mouse cerebral ischemia: A comparative longitudinal study of cerebral and retinal ischemia in the Koizumi and Longa middle cerebral artery occlusion models. J Cereb Blood Flow and Metab. 42 (11), 2080-2094 (2022).
- El Amki, M., et al. Hypothalamic, thalamic and hippocampal lesions in the mouse MCAO model: Potential involvement of deep cerebral arteries. J of Neurosci Methods. 254, 80-85 (2015).
- Engel, O., Kolodziej, S., Dirnagl, U., Prinz, V. Modeling Stroke in Mice - Middle Cerebral Artery Occlusion with the Filament Model. J Vis Exp. (47), e2423(2011).
- Trotman-Lucas, M., Kelly, M. E., Janus, J., Gibson, C. L. Middle cerebral artery occlusion allowing reperfusion via common carotid artery repair in mice. J Vis Exp. (143), e58191(2019).
- Morris, G. P., et al. A comparative study of variables influencing ischemic injury in the longa and koizumi methods of intraluminal filament middle cerebral artery occlusion in mice. PLoS One. 11 (2), e0148503(2016).
- Shimamura, N., Matchett, G., Tsubokawa, T., Ohkuma, H., Zhang, J. Comparison of silicon-coated nylon suture to plain nylon suture in the rat middle cerebral artery occlusion model. J Neurosci Methods. 156 (1-2), 161-165 (2006).
- Guan, Y., et al. Effect of suture properties on stability of middle cerebral artery occlusion evaluated by synchrotron radiation angiography. Stroke. 43 (3), 888-891 (2012).
- Yuan, F., et al. Optimizing suture middle cerebral artery occlusion model in C57BL/6 mice circumvents posterior communicating artery dysplasia. J Neurotrauma. 29 (7), 1499-1505 (2012).
- Kitagawa, K., et al. Cerebral ischemia after bilateral carotid artery occlusion and intraluminal suture occlusion in mice: Evaluation of the patency of the posterior communicating artery. J Cereb Blood Flow and Metab. 18 (5), 570-579 (1998).
- McColl, B. W., Carswell, H. V., McCulloch, J., Horsburgh, K. Extension of cerebral hypoperfusion and ischaemic pathology beyond MCA territory after intraluminal filament occlusion in C57Bl/6J mice. Brain Res. 997 (1), 15-23 (2004).
- Li, Y., et al. Distinctions between the Koizumi and Zea Longa methods for middle cerebral artery occlusion (MCAO) model: a systematic review and meta-analysis of rodent data. Sci Rep. 13 (1), 10247(2023).
- Trueman, R. C., et al. A critical re-examination of the intraluminal filament mcao model: impact of external carotid artery transection. Transl Stroke Res. 2 (4), 651-661 (2011).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
