نقدم بروتوكولا لإعداد المكثفات الجزيئية الحيوية الاصطناعية التي تتكون من نجوم نانوية من الحمض النووي البرمائي بدءا من قليل النيوكليوتيدات المكونة لها من الحمض النووي. يتم إنتاج المكثفات إما من مكون نانوستار واحد أو مكونين ويتم تعديلها للحفاظ على النسخ في المختبر للحمض النووي الريبي من قالب الحمض النووي المضمن.
مقالة منهجية
المكثفات الاصطناعية والبنى الشبيهة بالخلايا من الهياكل النانوية للحمض النووي البرمائي
في هذه المقالة
ملخص
الملخص
أصبحت القطرات والمكثفات الاصطناعية مكونات شائعة بشكل متزايد لأنظمة المحاكاة الحيوية المتقدمة والخلايا الاصطناعية ، حيث يمكن استخدامها لإنشاء تجزئة والحفاظ على استجابات شبيهة بالحياة. أظهرت الهياكل النانوية للحمض النووي الاصطناعي إمكانات كبيرة ككتل بناء لتشكيل المكثفات بسبب شكلها القابل للبرمجة ، ووظائفها الكيميائية ، وسلوك التجميع الذاتي. لقد أثبتنا مؤخرا أن "النجوم النانوية" للحمض النووي البرمائي ، التي تم الحصول عليها عن طريق تسمية تقاطعات الحمض النووي بشقوق كارهة للماء ، تشكل حلا قويا ومتعدد الاستخدامات بشكل خاص. يمكن برمجة مكثفات الحمض النووي البرمائية الناتجة لعرض البنى الداخلية المعقدة والمتعددة الأجزاء ، والاستجابة هيكليا لمختلف المحفزات الخارجية ، وتوليف الجزيئات الكبيرة ، والتقاط الحمولات وإطلاقها، والخضوع للتحولات المورفولوجية ، والتفاعل مع الخلايا الحية. نوضح هنا بروتوكولات تحضير مكثفات الحمض النووي البرمائية بدءا من قليل النيوكليوتيدات المكونة للحمض النووي. سنتناول (i) الأنظمة أحادية المكون التي تشكل مكثفات موحدة ، (ii) الأنظمة المكونة من عنصرين والتي تشكل مكثفات الغلاف الأساسي ، و (iii) الأنظمة التي يتم فيها تعديل المكثفات لدعم النسخ في المختبر للهياكل النانوية للحمض النووي الريبي.
المقدمة
الخلايا الاصطناعية عبارة عن أجهزة بمقياس ميكرومتر (10-50 ميكرومتر) تم إنشاؤها من الأسفل إلى الأعلى لتكرار وظائف وهياكل الخلايا البيولوجية الموجودة 1,2. غالبا ما ترتبط الخلايا الاصطناعية بأغشية مبنية من حويصلات ثنائية الطبقة الدهنية3،4،5،6،7 ، أو بوليميرسومات8،9 ، أو بروتينوسومات10،11 ، والتي يمكن استخدامها أيضا لإنشاء تجزئة داخلية12،13. مستوحاة من العضيات الخالية من الأغشية المعروفة بالحفاظ على وظائف مختلفة في الخلايا الحية14 ، تكتسب الهياكل مثل coacervates البوليمرية والمكثفات الجزيئية الحيوية والهلاميات المائية قوة دفع كبدائل متعددة الاستخدامات وقوية لإنشاء كل من التقسيم الخارجي والداخلي في الخلايا الاصطناعية15،16،17،18.
بالاستفادة من مجموعة الأدوات المتنوعة لتقنية النانو DNA19 ، تم تطوير حلول متعددة لهندسة القطرات والمكثفات الاصطناعية من التجميع الذاتي للهياكل النانوية للحمض النووي الاصطناعي ، والتي يمكن برمجة حجمها وشكلها ووظائفها وتكافؤها وتفاعلاتها المتبادلة بدقة20. قطرات أو مكثفات الحمض النووي متوافقة حيويا ويمكن أن تعمل كسقالات لكل من الخلايا الاصطناعية والعضيات ، وتستضيف التفاعلات الكيميائية والجزيئية الحيوية21 ، ومعلومات الحوسبة22,23 ، والتقاط الشحنات وإطلاقها24,25 ، والحفاظ على الاستجابات الهيكلية26.
من بين التصاميم المتنوعة للهياكل النانوية للحمض النووي المكونة للمكثفات ، أثبتت النجوم النانوية للحمض النووي البرمائي - التي يطلق عليها اسم C-stars - أنها قوية ومتعددة الاستخدامات27. النجوم C هي زخارف متفرعة بسيطة تتكون من تقاطع DNA ثابت (عادة رباعي الاتجاهات) ، تظهر منه أذرع الحمض النووي المزدوجة (ds)28. ثم يتم إمالة الأذرع بأجزاء كارهة للماء ، عادة الكوليسترول ، مما يجعل الهياكل النانوية برمائية ويقود تكثيفها بعد تلدين مباشر في وعاء واحد. توفر مكثفات C-star قابلية برمجة هيكلية ووظيفية دقيقة ، بما في ذلك إمكانية إنشاء بنى متعددة الأجزاء29,30 ، والاستجابة الهيكلية لمشغلات الحمض النووي والكاتيون31 ، وتوليف الجزيئات الكبيرة29 ، والتقاط الحمولات وإطلاقها32 ، والتفاعل مع الخلايا الحية33. أدناه ، سنصف ونناقش بروتوكولات إنتاج مكثفات C-star بدءا من oligonucleotides المكونة لها.
يلخص البروتوكول تحضير المكثفات الأحادية (المكونة من مكون واحد) والثنائي (المكون من عنصرين) ، باستخدام ثلاثة تصميمات مختلفة لنجوم C (الشكل 1) - "غير مستجيبة" و "مستجيبة ل TMSD" و "قوالب RNA". تتكون النجمة C "غير المستجيبة" (اللوحة A) من أربعة "خيوط أساسية" مع تسلسلات مميزة تشكل التقاطع رباعي الاتجاهات. ترتبط أربعة قليل نيوكليوتيدات متطابقة معدلة بالكوليسترول بالوصلة ، مما يضمن وجود جزيء الكوليسترول في نهاية كل ذراع. تشكل نجوم C غير المستجيبة سقالات بسيطة وخاملة للمكثفات الأحادية والثنائية. في C-star "المستجيب ل TMSD" (اللوحة B) ، يتم ضمان الاتصال بين الخيوط المعزولة والوصلة من خلال حبلا "جسر Toeholding " ، والذي يتميز بمجال "موطئ قدم" DNA أحادي الشريط (ss). في وجود شريط DNA غازي مع مجال موطئ قدم تكميلي ، يمكن تشغيل تفاعل إزاحة الشريط بوساطة إصبع القدم34 ، حيث يقوم الغازي بإزاحة جسر Toeholding ، مما يؤدي إلى قطع الاتصال بين الوصلة والأجزاء الكارهة للماء ويؤدي إلى تفكيك شبكة الحمض النووي32. أخيرا ، يتضمن "قالب الحمض النووي الريبي" C-star (اللوحة C) تعديلا "أساسيا" مكملا لشريط "الجسر" ، والذي يربط الأخير قالب ssDNA القابل للنسخ ل Broccoli aptamer29. يمكن العثور على تفاصيل تسلسل oligonucleotides المكونة للأنواع الثلاثة من تصميمات C-star المذكورة هنا في الجدول التكميلي 1 وعبر الأعمال السابقة29،30،32.

الشكل 1. مخططات لثلاثة تصميمات مختلفة لنجوم الحمض النووي البرمائية النانوية (C-stars). يمكن العثور على تسلسلات قليل النوكليوتيد لأمثلة مختلفة من النجوم C الموصوفة هنا في الجدول التكميلي 1. (أ) رسم تخطيطي لنجمة C مصممة لتشكيل مكثفات غير مستجيبة ، مع خيوط قليل النوكليوتيد المكونة "Core 1" و "Core 2" و "Core 3" و "Core 4" (ملونة بظلال من اللون الوردي) و "الكوليسترول النهائي" (ملون باللون الأزرق). يمثل كل لون فريد حبلا قليل النوكليوتيد بتسلسل فريد. "Core 1" و "Core 3" مكملان جزئيا ل "Core 2" و "Core 4" ، لكنهما غير مكملين لبعضهما البعض. (ب) رسم تخطيطي لنجمة C مصممة للتفكيك عند إضافة حبلا غازيا عبر إزاحة حبلا بوساطة إصبع القدم ، كما هو موضح في العمل السابق32. يتكون هذا النجم C من خيوط "الأساسية" و "الكوليسترول النهائي" (ملونة باللون الرمادي) بالإضافة إلى "مكمل طرفي" (كما هو موضح باللون البرتقالي) وخصلة "جسر تثبيت القدم" (كما هو موضح باللون الأزرق الداكن). يحتوي الأخير على نتوء من ستة نيوكليوتيدات يمكن أن يرتبط به حبلا غازي مصمم بشكل مناسب ثم يحل محل حبلا "جسر إصبع القدم" تماما ، مما يتسبب في تفكك تقاطع النجم النانوي المركزي (المكون من "Core 1 و 2 و 3 و 4") من الدوبلكس المكون من خيوط "المكمل الطرفي" و "الكوليسترول الطرفي". (ج) رسم تخطيطي لنجم C يعمل بقالب DNA ل RNA aptamer. يتكون هذا أيضا من حبلا "الكوليسترول النهائي" و "Core 2 و 3 و 4" (تظهر جميعها باللون الرمادي) ، بالإضافة إلى نسخة موسعة من حبلا "Core 1" (كما هو موضح باللون الوردي) ، وخيط "Base" (بني) ، وخيط "Bridge" (أصفر) ، و "قالب Aptامر" (أخضر). يشكل ازدواج الحمض النووي المكون من الشريطين الأخيرين منطقة محفز البوليميراز T7 ، والتي تحدد موقع بدء النسخ. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
تتشكل مكثفات C-star عند التلدين الحراري لقليل النيوكليوتيدات المكونة ، والتي يتم إجراؤها في البروتوكول المقدم هنا داخل الشعيرات الدموية الزجاجية المختومة ذات المقطع العرضي المستطيل بنسبة عرض إلى ارتفاع عالية. توفر هذه الحاويات مزايا رئيسية متعددة: ط) يضمن الختم منع التبخر تماما خلال خطوات التلدين (البطيئة أحيانا) ؛ ب) يتيح القاع المسطح ذو الجودة البصرية للشعيرات الدموية تصوير التجميع الذاتي (أو التفكيك) العابر ؛ ج) تضمن نسبة العرض إلى الارتفاع العالية للشعيرات الدموية استقرار المكثفات الثقيلة على مساحة واسعة ومسطحة ، مما يقلل من فرص الالتحام والتجميع في المراحل اللاحقة من عابر التجميع الذاتي الذي قد يحدث في حاويات على شكل إسفين (على سبيل المثال ، أنابيب الطرد المركزي الدقيقة) ، وإنتاج مجموعات مكثفات أحادية التشتت نسبيا ؛ د) يؤدي إجراء التلدين في شعيرات زجاجية ممدودة إلى تقليل تعرض العينة للواجهات الكارهة للماء (الهواء أو البلاستيك أو الزيت) ، والتي لوحظ أنها تزعج التجميع الذاتي عن طريق تجنيد قليل النيوكليوتيدات الكوليسترول البرمائي. بمجرد اكتمال بروتوكول التجميع ، يمكن استخراج المكثفات من الشعيرات الدموية الزجاجية لإجراء مزيد من التجارب التي تتضمن كواشف إضافية.
البروتوكول
ملاحظة: ينقسم البروتوكول إلى ثلاثة أقسام. يصف القسم 1 الخطوات الأساسية ، بما في ذلك تحضير قليل النوكليوتيدات الحمض النووي والشعيرات الدموية الزجاجية. يصف القسم 2 تحضير مكثفات C-star ذات التصميمات المختلفة ، بما في ذلك التصميمات المكونة من مكون واحد ومكونين ، واستخراجها من الشعيرات الدموية الزجاجية. يصف القسم 3 استخدام مكثفات C-star المكونة من عنصر واحد لقوالب الحمض النووي الريبي لتخليق أبتامير الحمض النووي الريبي. يجب على المستخدم اتباع الممارسات المعملية الجيدة طوال الوقت ، والتأكد من وجود جميع تقييمات المخاطر اللازمة والتخفيف من حدتها ، وارتداء معدات الحماية الشخصية المناسبة (PPE) ، بما في ذلك القفازات ونظارات السلامة ومعطف المختبر. يتطلب تنظيف الأنابيب الشعرية الزجاجية صوتنة ، أولا في محلول الفاعل بالسطح والثاني في الأيزوبروبانول أو الإيثانول. يتطلب استخراج مكثفات C-star من الأنابيب الشعرية استخدام قلم خربشة ماسي لتسجيل الزجاج وقطعه ، مع ما يرتبط بذلك من خطر الإصابة من شظايا الزجاج. يتم سرد المواد والمعدات والكواشف الرئيسية المستخدمة في جدول المواد. يتم تنقية معظم قليل النيوكليوتيدات غير الوظيفية من قبل المورد باستخدام التحلية القياسية ، باستثناء خيوط "Core 1 الموسعة" و "قالب Aptamer" ، والتي يتم طلبها باستخدام تنقية كهربائي بولي أكريلاميد جل (PAGE). يتم تنقية قليل النوكليوتيدات المعدلة بالكوليسترول من قبل المورد باستخدام كروماتوغرافيا سائلة عالية الأداء ذات الطور العكسي (HPLC).
1. المتطلبات الأساسية
ملاحظة: يجب تحضير المحاليل التالية في ماء عالي النقاء (النوع الأول) وتصفيتها باستخدام مرشحات حقنة 0.22 ميكرومتر: مخزن مؤقت Tris-EDTA (TE) ، يتألف من 10 mM Tris ، 1 mM EDTA ، عند درجة الحموضة ~ 8.0 ؛ مخزن مؤقت TE مكمل ب 2 M كلوريد الصوديوم ؛ ومخزن مؤقت TE مكمل ب 0.3 M كلوريد الصوديوم. يجب استخدام المحاليل العازلة في غضون 2 أسابيع من التحضير وتخزينها في درجة حرارة 4 درجة مئوية عندما لا تكون قيد الاستخدام. بالإضافة إلى ذلك ، سيتم استخدام محلول 1 ٪ من المنظفات البصرية القلوية في الماء عالي النقاء لتنظيف الشعيرات الدموية الزجاجية.
- تحضير قليل النوكليوتيدات الحمض النووي من الحالة المجففة بالتجميد
- أجهزة الطرد المركزي لفترة وجيزة (2000 × ز لمدة 10-30 ثانية) أنابيب oligonucleotides الحمض النووي المجففة بالتجميد لضمان تجمع كريات الحمض النووي المجفف بالتجميد في القاع.
ملاحظة: يتم الطرد المركزي في درجة حرارة الغرفة (RT) لمدة 10-30 ثانية. جهاز الطرد المركزي الصغير المستخدم هنا افتراضيا إلى 2000 × جم (6000 دورة في الدقيقة). - أضف الكمية المناسبة من المخزن المؤقت TE لإعادة تكوين كل قليل النوكليوتيد عند 100 ميكرومتر. دوامة جيدا لضمان الذوبان الكامل ، ثم قم بتدوير الأنابيب لتجميع كل السوائل وفقا للخطوة 1.1.1.
- لكل محلول مخزون ، قم بقياس الامتصاص عند 260 نانومتر واحسب التركيز النهائي باستخدام معامل الانقراض لتسلسل قليل النوكليوتيد قيد الاختبار.
ملاحظة: عادة ما يوجد معامل الانقراض لتسلسل قليل النوكليوتيد المعين في ورقة بيانات المورد ولكن يمكن أيضا حسابه باستخدام أدوات عبر الإنترنت باستخدام أقرب نموذج جار35 أو قيم مجدولة لمعامل الانقراض للنيوكليوتيدات الفردية36. - قم بتخزين قليل النيوكليوتيدات المعاد ترطيبها في 4 درجات مئوية لفترات قصيرة من الزمن (تصل إلى 1 أسبوع) أو في -20 درجة مئوية للتخزين طويل الأجل (حتى 6 أشهر).
- أجهزة الطرد المركزي لفترة وجيزة (2000 × ز لمدة 10-30 ثانية) أنابيب oligonucleotides الحمض النووي المجففة بالتجميد لضمان تجمع كريات الحمض النووي المجفف بالتجميد في القاع.
- تنظيف الأنابيب الشعرية الزجاجية
- Sonicate في 1 ٪ المنظفات البصرية القلوية للمكونات البصرية في الماء منزوع الأيونات.
- خذ العدد المطلوب من الأنابيب الشعرية الزجاجية المراد تنظيفها وضعها في حاوية طويلة وضيقة (على سبيل المثال ، دورق أو أنبوب طرد مركزي 15/50 مل) بحيث لا تستلقي الشعيرات الدموية بشكل مسطح على قاعدة الحاوية.
- أضف المنظف إلى الحاوية ، واملأه فوق مستوى الأنابيب الشعرية مباشرة. تأكد من عدم وجود فقاعات هواء محاصرة داخل الأنابيب الشعرية - انقر لإزالتها ، إذا لزم الأمر. قم بتغطية الحاوية بشكل غير محكم (على سبيل المثال ، في ورق القصدير أو باستخدام غطاء أنبوب الطرد المركزي ، مع التأكد من أنها ليست مغلقة بإحكام).
- اضبط حمام مائي صوتنة على 40 درجة مئوية ، ضع الحاوية المغطاة في وضع مستقيم في الحمام ، وقم بصوتنة لمدة 30 دقيقة. تأكد من أن الرقاقة ، إذا تم استخدامها ، لا تتلامس مع الماء في حمام الصوتنة.
ملاحظة: حمام صوتنة المستخدمة في هذه الدراسة الافتراضي إلى تردد صوتنة من 60 هرتز وقوة صوتنة من 150 W.
تنبيه: لا تقم أبدا بإضافة أو إزالة العناصر من حمام صوتنة أثناء الجري ؛ قم دائما بإيقاف البروتوكول أولا. - بمجرد اكتمال صوتنة ، قم بإيقاف تشغيل عنصر التسخين في حمام مائي صوتنة ، ثم شطف الشعيرات الدموية جيدا في الحاوية بماء منزوع الأيونات أو فائق النقاء - ما لا يقل عن خمس مرات ، وتجاهل ماء الشطف في كل مرة.
- Sonicate في 1 ٪ المنظفات البصرية القلوية للمكونات البصرية في الماء منزوع الأيونات.
- سونيكات في الأيزوبروبانول أو الإيثانول.
- إلى الأنابيب الشعرية الزجاجية في حاوية التنظيف ، أضف الأيزوبروبانول أو الإيثانول (70٪ على الأقل) ، وملء أعلى بقليل من مستوى الأنابيب الشعرية. كما في الخطوة 1.2.1.2 ، تأكد من عدم وجود فقاعات هواء محبوسة في الأنابيب الشعرية وقم بتغطية الحاوية بشكل غير محكم.
- ضع الحاوية في وضع مستقيم في حمام صوتنة وصوتنة لمدة 15-30 دقيقة.
تنبيه: الأيزوبروبانول والإيثانول قابلان للاشتعال ، مع وجود نقاط وميض أسفل RT. قلل من أحجام المذيبات المستخدمة أثناء التنظيف عن طريق اختيار حاوية ذات حجم مناسب ، وتأكد من تغطية الحاويات بشكل فضفاض ، ولا تترك حمام الصوتنة دون مراقبة خلال هذه المرحلة. - بمجرد اكتمال صوتنة ، تخلص بشكل مناسب من الأيزوبروبانول أو الإيثانول وجفف الشعيرات الدموية تحت النيتروجين ، وتعامل معها بأنسجة خالية من النسالة.
2. تحضير واستخراج مكثفات C-star (الشكل 2)
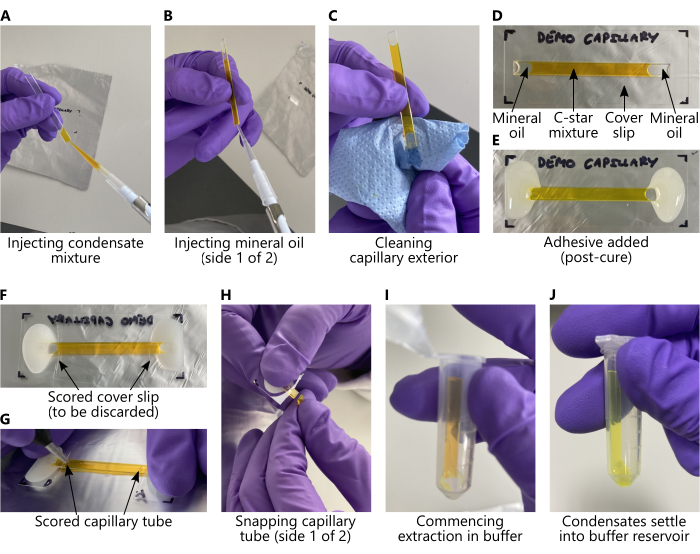
الشكل 2: تحميل مخاليط C-star واستخلاص المكثفات من الأنابيب الشعرية الزجاجية. في جميع الألواح ، تم استبدال خليط C-star بمحلول مائي من 25 mM calcein للمساعدة في الرؤية. (أ-ه) الخطوات الرئيسية ، من أجل ، يجب اتخاذها قبل التلدين ، المقابلة لأقسام البروتوكول 2.1 و 2.2. (ف-ج) الخطوات الرئيسية ، من أجل ، يجب اتخاذها بعد التلدين ، المقابلة لقسم البروتوكول 2.3. أثناء الاستخراج (الألواح (I-J)) ، سوف تترسب مكثفات الحمض النووي من الشعيرات الدموية إلى الخزان العازل طالما يتم تخزين أنبوب الطرد المركزي الدقيق عموديا. لن تكون المكثفات مرئية للعين المجردة. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
- تحضير مخاليط C-star للمكثفات أحادية المكون
ملاحظة: يمكن العثور على تفاصيل التسلسل لمختلف التصاميم للمكونات الفردية في الجدول التكميلي 1 وعبر الأعمال السابقة29،30،32. تم تطوير بروتوكولات التلدين البطيء المحددة في الخطوتين 2.1.9 و 2.2.2 لضمان استرخاء شبكات النجوم النانوية إلى أشكال مدمجة ، بالنظر إلى الخصائص الريولوجية التي تعتمد بشدة على درجة الحرارة لشبكات النجومالنانوية 37.- ستختلف مكونات قليل النوكليوتيد والعازلة اعتمادا على تصميم C-star المطلوب. قم بإعداد خليط 60 ميكرولتر من مكثفات C-star أحادية المكون بتركيز 5 ميكرومتر إما لنجم C رباعي الأذرع غير المستجيب ، أو C-star المستجيب ل TMSD ، أو C-star الذي يجرب الحمض النووي الريبي.
- لكل تصميم ، ماصة المكونات المناسبة المدرجة في الجدول التكميلي 2 في أنبوب طرد مركزي دقيق منفصل وتخلط جيدا عن طريق الماصة.
ملاحظة: يفترض أن تكون جميع محاليل مخزون قليل النوكليوتيد بتركيز 100 ميكرومتر في TE. - اسحب 60 ميكرولتر بالكامل من محلول C-star والماصة بعناية لحقن الخليط في الأنبوب الشعري الزجاجي الجاف النظيف كما هو موضح في الشكل 2A ، مع الحرص على تجنب إدخال فقاعات الهواء.
- باستخدام ماصة ، قم بحقن ما يقرب من 9-12 ميكرولتر من الزيت المعدني في كل طرف من طرفي الأنبوب الشعري ، مع تغطية العينة بحيث لا توجد واجهة حرة بين محلول C-star والهواء (انظر الشكل 2B). بعد ذلك ، جفف الأنبوب الشعري بعناية بمناديل ورقية لضمان عدم وجود زيت على السطح الخارجي منه (الشكل 2C) ، مع الحرص على عدم فتل الزيت المعدني أو محلول C-star خارج الأنبوب الشعري. النتيجة النهائية موضحة في الشكل 2D.
- قم بإعداد مجموعة صغيرة من غراء الإيبوكسي المكون من جزأين للالتصاق بكل طرف من طرفي الأنبوب الشعري ، الجانب المسطح لأسفل ، بزلة غطاء زجاجي. تأكد من تغطية فتحات الأنبوب بالكامل بالغراء ، مما يشكل ختما مستمرا ، كما هو موضح في الشكل 2E.
- توضع جانبا للعلاج لمدة لا تقل عن 3 ساعات ، ولكن يفضل بين عشية وضحاها.
- بعد ~ 30 دقيقة من المعالجة ، افحص طبقة الغراء بحثا عن وجود فجوات في الختم ناتجة عن فقاعات الهواء. إذا كانت هذه موجودة ، فقم بإغلاقها باستخدام كمية صغيرة من الغراء.
- لف الأنبوب الشعري الملصق على غطاء الغطاء بورق القصدير ، مع ضمان إبقاء الرقاقة مسطحة في الجانب السفلي من انزلاق الغطاء الزجاجي. يضمن الرقاقة اتصالا حراريا جيدا بينه وبين عنصر التسخين في جهاز التدوير الحراري (انظر الخطوة التالية).
- ضع العينة المغلفة في جهاز تدوير حراري وصلب باستخدام البروتوكول التالي: امسك عند 95 درجة مئوية لمدة 30 دقيقة ، ثم تبرد من 85 درجة مئوية إلى 50 درجة مئوية عند -0.04 درجة مئوية · دقيقة -1 ، ثم تبرد من 50 درجة مئوية إلى RT عند -0.5 درجة مئوية · دقيقة -1.
- قم بتخزين مكثفات C-star الملدنة عند 4 درجات مئوية أو RT لفترات طويلة (أشهر) طالما ظلت الشعيرات الدموية مغلقة ، حيث يقوم التلدين الحراري بتعقيم العينة بشكل فعال وتشويه النيوكليازات. حافظ على الشعيرات الدموية مسطحة أثناء التخزين والمناولة لمنع المكثفات من الترسب نحو أحد طرفيها وتجميعها.
- تحضير مخاليط C-star للمكثفات الثنائية
ملاحظة: للإبلاغ عن اختيار مجموعات النجوم C للأنظمة الثنائية ، راجع عمل Malouf et al. ، الذي يصف قواعد التصميم وسلوك الطور المتوقع لمكثفات C-starالثنائية 30.- لتحضير المكثفات الثنائية ، ادمج 30 ميكرولتر من مخاليط C-star الموصوفة في الخطوة 2.1 أعلاه في حجم إجمالي قدره 60 ميكرولتر ، واخلطها جيدا ، وقم بتحميلها في الشعيرات الدموية ، واتبع الخطوات 2.1.4-2.1.8.
- ضع العينة المغلفة في جهاز تدوير حراري وصلب باستخدام البروتوكول التالي: امسك عند 95 درجة مئوية لمدة 30 دقيقة ، ثم تبرد من 85 درجة مئوية إلى 40 درجة مئوية عند -0.01 درجة مئوية · دقيقة -1 ، ثم تبرد من 40 درجة مئوية إلى RT عند -0.1 درجة مئوية · دقيقة -1.
- استخراج مكثفات C-star من الأنابيب الشعرية.
- قم بإعداد أنبوب طرد مركزي كبير (1.5 مل أو 2.0 مل) يحتوي على 60 ميكرولتر من 0.3 متر كلوريد الصوديوم في مخزن TE.
- قم بفك غلاف العينة الشعرية واستخدم قلم خربشة ماسي لتسجيل الجانب السفلي من غطاء الغطاء في كل طرف داخلي للمنطقة الملصقة (الشكل 2F). اقطع غطاء الغطاء في هذه المنطقة وتخلص منه بشكل مناسب.
- قم بتنظيف الأنابيب الشعرية جيدا بالإيثانول وجافة.
- سجل كل طرف من طرفي الأنابيب الشعرية باستخدام قلم الكتابة الماسي ، أولا بالجانب السفلي (الشكل 2G) ، ثم اقلب الأنابيب وسجلها "الجانب الأيمن لأعلى".
- تأكد من أن خطوط النتيجة لا تتداخل مع واجهة الزيت والماء. يجب أن تكون داخل المنطقة المائية لمنع الزيت من البقاء في العينة المستخرجة.
- التقط نهايات الأنابيب الشعرية (الشكل 2H) ، مع الاحتفاظ بالجزء المركزي من الأنبوب والتخلص من الباقي. ضع الأنبوب الشعري المقطوع في أنبوب الطرد المركزي الدقيق المحضر في الخطوة 2.3.1 ، مع التأكد من أن الجزء السفلي من الأنبوب الشعري يتلامس مع المحلول العازل (الشكل 2I).
- سوف تترسب المكثفات من الأنبوب إلى الخزان العازل من خلال الجاذبية. اسمح بحدوث ذلك لمدة لا تقل عن 10 دقائق (الشكل 2J). قم بإزالة الأنبوب الشعري المقطوع وتخلص منه بشكل مناسب. يحد نهج الاستخراج اللطيف هذا من مخاطر تجميع المكثفات.
3. نسخ أبتامير الحمض النووي الريبي من مكثفات C-star التي تعمل على قوالب الحمض النووي الريبي
ملاحظة: لإنتاج أبتامير البروكلي RNA ، يلزم وجود محلول ثنائي فلورو -4-هيدروكسي بنزيليدين إيميدازوليدينون (DFHBI) - يتم تحضير مسحوق DFHBI أولا كمحلول مخزون عند 10 mM في ثنائي ميثيل سلفوكسيد (DMSO) ، والذي يتم تخفيفه بعد ذلك إلى 600 ميكرومتر في الماء الخالي من RNase و DNase.
- غسل مكثفات C-star التي تعمل بقوالب الحمض النووي الريبي
ملاحظة: يتم غسل مكثفات C-star التي تعمل بقوالب الحمض النووي الريبي ثلاث مرات لضمان إزالة قليل النيوكليوتيدات غير المنضمة.- اترك محلول المكثفات المستخرجة يستقر لمدة 5 دقائق على الأقل ، ثم قم بإزالة ما يقرب من نصف حجم المادة الطافية.
- للحصول على حجم 60 ميكرولتر من المكثفات المستخرجة ، قم بإزالة ما بين 25-30 ميكرولتر من المادة الطافية.
- ماصة من أعلى مستوى السائل لتقليل عدد المكثفات التي تمت إزالتها خلال هذه الخطوة.
- أضف نفس الحجم البالغ 0.3 M NaCl في TE لاستبدال المادة الطافية التي تمت إزالتها واخلطها عن طريق الماصة.
- كرر الخطوتين السابقتين لما مجموعه ثلاث دورات.
- اترك محلول المكثفات المستخرجة يستقر لمدة 5 دقائق على الأقل ، ثم قم بإزالة ما يقرب من نصف حجم المادة الطافية.
- تحضير خليط النسخ T7
ملاحظة: يتم تحضير خليط النسخ T7 باستخدام مجموعة النسخ CellScript T7-FlashScribe. الخطوة 3.2.2 هي تعديل لبروتوكول الشركة المصنعة ، والذي يمكن العثور عليه هنا38. هنا نصف نسخ البروكلي RNA aptamer ، الذي يحفز مضان في DFHBI عند الربط. بالنسبة للأبتامير المضيئة الأخرى ، استبدل حجم DFHBI الموصوف في الخطوة 3.2.2 بالفلوروجين المناسب. بالنسبة للنصوص الأخرى ، قم بإزالة هذا المكون بالكامل.- قم بإعداد محلول مخزون قدره 10 mM DFHBI في DMSO ، ثم قم بتخفيف القسمة إلى تركيز نهائي قدره 600 ميكرومتر باستخدام ماء خال من RNase و DNase.
- قم بإذابة مكونات مجموعة النسخ على الثلج ثم ماصة ما يلي في أنبوب طرد مركزي دقيق معقم في درجة حرارة الغرفة باستخدام أطراف ماصة معقمة: 2 ميكرولتر من 10x T7-Transcription Buffer (متوفرة في مجموعة النسخ) ، 1.8 ميكرولتر من 100 mM ATP ، 1.8 ميكرولتر من 100 mM CTP ، 1.8 ميكرولتر من 100 mM UTP ، 1.8 ميكرولتر من 100 mM GTP ، 2 ميكرولتر من 100 mM DTT ، 2 ميكرولتر من 600 ميكرومتر DFHBI ، 0.5 ميكرولتر من مثبط RNase ، 2 ميكرولتر من محلول إنزيم T7 (متوفر في مجموعة النسخ).
- امزج المحلول برفق عن طريق الماصة.
- استخدم خليط النسخ للخطوة 3.3 (تخليق نسخة الحمض النووي الريبي) مباشرة بعد التحضير.
- تخليق نسخة الحمض النووي الريبي
- في غرفة مناسبة للتصوير المجهري ، ماصة 3.3 ميكرولتر من المكثفات المغسولة المحضرة من نجوم C التي تعمل بقوالب الحمض النووي الريبي وأضف الحجم الكلي لخليط النسخ المحضر مسبقا.
- الحصول على صور مجهرية لمدة 18 ساعة ، تبدأ مباشرة بعد إضافة خليط النسخ إلى المكثفات.
ملاحظة: تعتمد إعدادات الفحص المجهري على النظام المجهز. تأكد من استخدام إعدادات الإثارة والانبعاث المناسبة لأي فلوروفورات في العينة ، إلى جانب أوقات التعرض التي لن تؤدي إلى التشبع مع تقدم النسخ. كما هو الحال بالنسبة لأي فاصل زمني ، يجب إيجاد حل وسط بين ليزر عالي بما يكفي أو طاقة LED للحصول على إشارة جيدة مع تقليل مخاطر التبييض الضوئي أيضا. سيتم تقليل التبييض الضوئي على مدى فترات زمنية طويلة على الأنظمة القائمة على LED مقارنة بالأنظمة القائمة على الليزر. فترات التصوير المقترحة: 20 دقيقة لأول ساعتين ، و 30 دقيقة بعد ذلك.
النتائج
بعد التلدين ، يمكن تصوير مكثفات C-star مباشرة في الأنبوب الشعري ، أو بعد الاستخراج ، لتأكيد تكوينها. بالنسبة لجميع الاختلافات في تصميم C-star ، يجب على المرء أن يلاحظ المكثفات الكروية أو متعددة السطوح المميزة التي يبلغ قطرها حوالي 10-50 ميكرومتر ، وتتشكل الأخيرة عند حدوث التبلور28,32. بالنسبة للمكثفات أحادية المكون ، يجب أن تكون المكثفات منفصلة وموحدة المظهر ، وقد تظهر متعددة السطوح (الشكل 3 أ) أو كروية (الشكل 3 ب ، ج) اعتمادا على تصميم النجمة C المستخدم. يعتمد مورفولوجيا المكثفات الثنائية على خصائص مجموعات C-star المستخدمة ، كما هو موضح سابقا30. يوضح الشكل 3D المكثفات الثنائية التي تظهر بشكل متوقع فصل الطور ، ويمكن ملاحظتها في التصوير الميداني الساطع. يمكن أن يتداخل وجود فقاعات الهواء في الأنبوب الشعري أيضا مع التجميع الذاتي للمكثفات ، مما يؤدي غالبا إلى التجميع بالقرب من واجهة الهواء (الشكل 4 أ ، ب). قد تؤدي المخاليط المحضرة بشكل غير صحيح ، مثل تلك التي تفتقر إلى مكونات قليل النوكليوتيد أو تلك المحضرة بمقاييس متكافئة غير متوازنة ، إلى عدم تشكل المكثفات على الإطلاق أو تشكيل شبكات أو مجاميع متصلة غير كروية كما في الشكل 4C. وبالمثل ، يمكن أن تظهر المكثفات الثنائية المعدة بشكل غير صحيح تجميعا وشبكات ، وقد لا تظهر أيضا فصلا طوريا يمكن ملاحظته ، كما هو موضح في الشكل 4D.
لنسخ أبتامير إضاءة الحمض النووي الريبي ، سيتم ملاحظة نتيجة ناجحة من خلال مراقبة الزيادة في مضان الفلوروجين بمرور الوقت ، على سبيل المثال عن طريق الفحص المجهري (الشكل 5) أو القياس الطيفي.
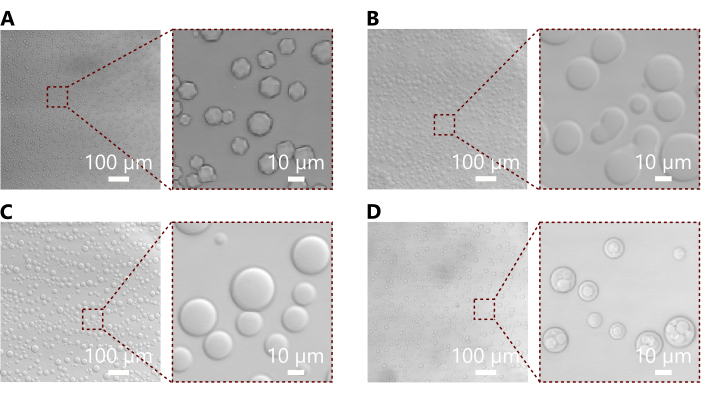
الشكل 3: صور مجهرية تمثيلية توضح مكثفات C-star الملدنة. (أ) صورة مجهرية ساطعة المجال وأقحم داخلي يظهران المكثفات المتكونة من نجم C غير مستجيب بطول ذراع يبلغ 28 زوجا من القواعد. نلاحظ هنا التشكل متعدد السطوح الذي يعكس الترتيب البلوري لنجوم C الأصغر32. (ب) صورة مجهرية ساطعة المجال وأقحم داخلي يظهران المكثفات المتكونة من نجمة C مستجيبة ل TMSD ، بطول ذراع يبلغ 50 زوجا من القواعد. هذه المكثفات كروية على نطاق واسع ، على الرغم من أن العديد منها يظهر مورفولوجيا أكثر انتظاما يدل على اندماج مكثفات متعددة ، كما هو متوقع لنجوم C الأكبر حجما والتي تميل إلى أن تكون أكثر مرونة32. (ج) صورة مجهرية ساطعة المجال وملحق داخلي يظهران المكثفات المتكونة من نجم C غير مستجيب بطول ذراع 35 زوجا من القواعد. تبدو هذه المكثفات كروية ، على الرغم من أن بيانات تشتت الأشعة السينية ذات الزاوية الصغيرة من العمل السابق تظهر أن بنيتها المجهرية بلورية32. (د) صورة مجهرية للحقل الساطع وأقحم داخلي يظهران المكثفات الثنائية المتكونة من مجموعة من مجموعات النجوم C المستخدمة أيضا في اللوحين (B) و (C). يؤدي الجمع بين هاتين المجموعتين إلى تكوين مكثفات ذات فصل طور متميز ، مرئي بدون وضع علامات على الفلورسنت. قد لا تظهر المجموعات الأخرى فصل الطور ، كما هو موضح في العمل السابق30. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
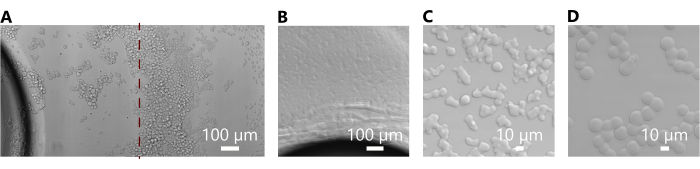
الشكل 4: صور مجهرية توضح المشكلات الشائعة التي تمت مواجهتها مع المكثفات المعدة بشكل غير صحيح. (أ) صور مجهرية ساطعة المجال توضح المكثفات المتكونة من نجم C غير مستجيب يبلغ طول ذراعه 28 زوجا من القواعد (تشكلت بنجاح في الشكل 3 أ) في وجود فقاعة هواء في الأنبوب الشعري. تتكون اللوحة من صورتين مجهريتين مخيطتين عند الخط الأحمر المتقطع وتظهر تجميع المكثفات بالقرب من السطح البيني الهوائي. (ب) صورة مجهرية للحقل الساطع تظهر المكثفات المتكونة من نجمة C مستجيبة ل TMSD بطول ذراع 50 زوجا من القواعد (والتي تشكلت بنجاح في الشكل 3B) في وجود فقاعة هواء في الأنبوب الشعري. هنا ، اندمجت المكثفات لتشكيل شبكة مترابطة مستمرة بسبب الطبيعة الأكثر مرونة للمكثفات المكونة من زخارف C-star أكبر32. (ج) صورة مجهرية للمجال الساطع تظهر المكثفات المتكونة من نجم C غير مستجيب بطول ذراع يبلغ 35 زوجا من القواعد (والتي تشكلت بنجاح في الشكل 3C). التشكل غير منتظم وزاوي ، مما يشير إلى وجود خطأ في التحضير ، وربما قياسات متكافئة غير متوازنة. (د) صورة مجهرية للحقل الساطع للمكثفات الثنائية المتكونة من مجموعة من مجموعات النجوم C كما في Fig. 3D. هذه المكثفات متصلة بشكل كبير ، كما هو الحال في اللوحة (C) ، كما أنها لا تظهر فصل الطور المتوقع (انظر الشكل 3D) ، مما يشير إلى وجود خطأ في تحضيرها. في حين أنه من الصعب تحديد المصادر الدقيقة للأخطاء ، فإن القياسات المتكافئة غير الصحيحة أو استخدام تسلسلات قليلة النوكليوتيدات غير الصحيحة هي أسباب محتملة. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
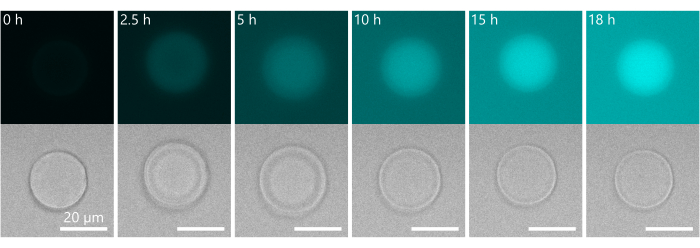
الشكل 5: النتائج التمثيلية من نسخ قالب الحمض النووي (DNA) المدمج ل RPAMER. يظهر الفاصل الزمني تخليق أبتامير البروكلي المضيء عن طريق نسخ قالب الحمض النووي المضمن في المكثفات المصنوعة من شكل النجمة C الموصوف في الشكل 1C. يرتبط الأبتامير ب DFHBI الموجود في خليط النسخ ، مما يؤدي إلى زيادة في التألق بمرور الوقت. ومن الجدير بالذكر هنا حدوث تغيير في مورفولوجيا المكثف بمرور الوقت ، والذي يبدو أنه يشكل بنية قشرة أساسية. من المحتمل أن تكون هذه الظاهرة ناتجة عن تورم الطبقة الخارجية للمكثفات بسبب اختلال الضغط التناضحي العابر المرتبط بالإنتاج المحلي ل RNA aptamer. قد يحدث إنتاج الأبتامير بشكل تفضيلي في الطبقات الخارجية للمكثفات بسبب الميل المبلغ عنه لشريط قالب الأبتامر للتراكم في هذه المنطقة30. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
الجدول التكميلي 1: تفاصيل التسلسل لمختلف تصاميم المكونات المفردة. الرجاء الضغط هنا لتنزيل هذا الملف.
الجدول التكميلي 2: حجم المكونات لكل تصميم. الرجاء الضغط هنا لتنزيل هذا الملف.
المناقشة
يوفر البروتوكول الموصوف هنا نهجا لتحضير مكثفات مكونة من مكون واحد أو مكونين من نجوم الحمض النووي البرمائية النانوية ، مع اختلافات في التصميم لإدخال استجابات مختلفة في المكثفات. ينتج البروتوكول المعطى مكثفات في محلول عازل يبلغ 0.3 M NaCl في TE ، ولكن يمكن تعديل شروط المخزن المؤقت عن طريق تعديل الأحجام المذكورة أعلاه بشكل مناسب. وقد درست الأعمال السابقة تكوين مكثفات C-star في 0.2 M NaCl في TE و 0.1 M NaCl في TE وفي محلول ملحي مخزن بالفوسفات (PBS)32. يتم إنتاج مكثفات C-star بتركيز نهائي قدره 5 ميكرومتر ، ولكن هذا أيضا يمكن أن يتغير عن طريق تعديل تركيزات قليل النوكليوتيد و / أو الأحجام المضافة في البروتوكول أعلاه بشكل مناسب. وتبعا للاختلافات المرغوبة، قد يكون من الضروري تحضير محاليل مخزون قليل النوكليوتيد بتركيزات مختلفة وفي مخازن مختلفة مقارنة بالبروتوكول الموصوف في القسم 1، على الرغم من أن الجوانب العملية للبروتوكول تظل كما هي. يمكن تعديل تصميم C-star بسهولة لتقديم وظيفة أو استجابة مختلفة ، كما هو مفصل في العمل السابق32. تشمل اختلافات التصميم إدخال الزخارف التي تستجيب لتغيرات الأس الهيدروجيني32 ، أو أيونات البوتاسيوم31 ، أو تسلسل قليل النوكليوتيد30,32. إذا رغبت في تصميمات جديدة ، ينصح أولا باختبار التجميع حسابيا (باستخدام أدوات مثل NUPACK39) ثم اختبار تكوين النجوم النانوية المكافئة غير الكولسترول باستخدام الرحلان الكهربائي لهلام الأغاروز 32,40. يعتمد مدى فصل الطور في المكثفات الثنائية على مجموعة مجموعات C-star المستخدمة ، كما هو موضح في العمل السابق30. نلاحظ أن بروتوكولات التلدين المحددة لتكوين المكثفات تتطلب جداول زمنية أطول بكثير من تلك النموذجية لطي الهياكل النانوية الصغيرة للحمض النووي المشابهة لنجوم C الفردية. التلدين البطيء مطلوب بالفعل لتمكين التوازن على مقاييس الطول الأكبر للمكثفات. بالنسبة للمكثفات أحادية المكون ، تبلغ مدة البروتوكول المقترح 17 ساعة ، وبالنسبة للمكثفات الثنائية ، يتم استخدام بروتوكول تلدين أطول (~ 3 أيام) للاقتراب من التوازن الديناميكي الحراري. لقد وجدنا أن هذه البروتوكولات تسفر عن نتائج قابلة للتكرار عبر جميع مجموعات C-star المختلفة المستخدمة حتى الآن ، ولكن إذا رغب الباحثون في تحسين إنتاجية العينة ، فإننا نوصي بإجراء دراسة منهجية حيث يتم تعديل معدلات التلدين للعثور على أقصر بروتوكول ممكن حيث يمكن تحقيق الأشكال المطلوبة للنظام قيد الاختبار. يوصى بترك الانتظار لمدة 30 دقيقة عند 95 درجة مئوية دون تعديل ، لأن هذه الخطوة تعقم العينة بشكل فعال وتتيح التخزين طويل الأجل في الأنابيب الشعرية.
تعتبر الغرفة التي يتم فيها إنتاج مكثفات C-star ضرورية لتكوينها بنجاح. يجب أن تكون الغرفة مصنوعة من الزجاج أو الكوارتز ؛ سيؤدي استخدام الحاويات البلاستيكية مثل مادة البولي بروبيلين ، وهي مادة نموذجية لأنابيب الطرد المركزي الدقيقة ، إلى تعطيل التجميع الذاتي بسبب التفاعلات الكارهة للماء بين البلاستيك والكوليسترول. ستؤثر نسبة العرض إلى الارتفاع لحاوية التلدين وتركيز خليط C-star أيضا على خصائص المكثفات ، وخاصة حجمها وتجميعها. على وجه التحديد ، إذا تم استخدام حاوية "أطول" ، مع مساحة سطح صغيرة في الأسفل بالنسبة لارتفاعها ، فإن مكثفات C-star سوف تترسب في القاع بكثافة سطح عالية ، مما يفضل تكوين نقاط اتصال بين المكثفات. إذا حدثت هذه في وقت متأخر من عملية التلدين الحراري ، عندما تكون درجة الحرارة منخفضة نسبيا ، وتتصرف المكثفات إما كسوائل أو مواد صلبة عالية اللزوجة ، فإن لمس المكثفات سيفشل في الاسترخاء إلى أشكال كروية وبدلا من ذلك يشكل مجاميع غير منتظمة من التكوينات المدمجة جزئيا. عند سحب خليط C-star إلى أنابيب شعرية ، يجب توخي الحذر لتجنب إدخال فقاعات الهواء - تميل الركام الكبيرة إلى التكون عند واجهة الهواء / الماء ، وبالتالي فإن المكثفات المستخرجة سيكون لها حجم وشكل غير مثاليين. سيؤدي تجفيف نهايات الأنابيب الشعرية بعد حقن خليط C-star أو الزيت المعدني إلى تحسين الالتصاق. يجب أن تكون المادة اللاصقة المختارة لزجة بدرجة كافية لتغطية فتحات الأنبوب الشعري تماما دون أن تكون شريرة في الأنبوب ، وخاملة للزيت المعدني ، ومتوافقة مع الزجاج ، ومستقرة في درجات حرارة التلدين المستخدمة. لقد وجدنا أن لاصق الإيبوكسي Araldite Rapid المكون من جزأين مناسب لأغراضنا على الرغم من تصنيفه فقط إلى درجات حرارة 80 درجة مئوية. ستؤدي فقاعات الهواء أو الفجوات الموجودة في الغراء إلى شعيرات دموية محكمة الغلق بشكل غير كامل ، والتي تميل إلى التسرب أثناء التلدين. بعد معالجة الغراء ، فإن لف العينات بورق الألمنيوم له فائدة مزدوجة تتمثل في احتواء أي تسرب وتحسين الاتصال الحراري بين العينة وجهاز التدوير الحراري. يجب أن تبقى الرقاقة ناعمة ومسطحة قدر الإمكان لضمان الحفاظ على الشعيرات الدموية مستوية أثناء التلدين. يمكن تخزين المكثفات الملدنة في الشعيرات الدموية على المدى الطويل في درجة حرارة الغرفة وإعادة تلدينها إذا لزم الأمر. يجب التعامل مع العينات بعناية - من المحتمل أن تتجمع المكثفات عند ملامستها ، لذلك يجب تخزين الشعيرات الدموية بشكل مسطح. للحصول على التصوير المجهري الأمثل ، يمكن تسجيل الغطاء وإزالته مع ترك الأنابيب الشعرية سليمة. تميل المكثفات إلى أن تكون أكبر من 5 ميكرومتر في القطر ، ولم نلاحظ حركة براونية كبيرة أثناء تصويرها29,30.
يوصى بإعداد دفعات مستقلة متعددة من مكثفات C-star لضمان أن الاختلافات المحتملة التي لوحظت بين العينات تعكس الاختلافات في التركيب أو ظروف التلدين ، وليس الاختلافات الناجمة عن الأخطاء التجريبية المحتملة.
من المحتمل أن يتم إدخال جزيئات زجاجية صغيرة في محلول المكثف نتيجة لعملية الاستخراج. يمكن تقليلها عن طريق غمس الأطراف المقطوعة للأنبوب الشعري بعناية بشريط نظيف من Parafilm ، وهو فعال للغاية في التقاط الزجاج ، قبل وضع الأنبوب الشعري المقطوع في أنبوب الطرد المركزي الدقيق الذي يحتوي على محلول عازل. أثناء الاستخراج ، يمكن زيادة عدد المكثفات المستخرجة إلى أقصى حد عن طريق الدوران لفترة وجيزة أسفل أنبوب الطرد المركزي الدقيق الذي يحتوي على الأنبوب الشعري المقطوع ، على الرغم من أن هذا يزيد من احتمال اندماج المكثفات وتشكيل أشكال غير مثالية. بعد الاستخراج ، يجب تخزين المكثفات في درجات حرارة الثلاجة (عادة 4 درجات مئوية) واستخدامها في غضون ثلاثة أيام لتجنب المشاكل المحتملة مع التلوث البيولوجي ولأن المكثفات في أنابيب الطرد المركزي الدقيقة سوف تتجمع وتتجمع بمرور الوقت بسبب الأشكال المستديرة أو المدببة عادة لهذه الأنابيب. يجب تجنب السحب القوي جدا للمكثفات المستخرجة ، حيث يمكن أن تتلف بسبب تدفق القص المفرط.
لنسخ أبتامير الحمض النووي الريبي ، قد يكون من الضروري تعديل حجم خليط النسخ المستخدم حيث لا يمكن التحكم بدقة في عدد وحجم المكثفات (وبالتالي تركيز القالب) في كل تفاعل فردي. في التجارب الموصوفة في القسم 3 ، يتم استخدام فائض من خليط النسخ بالنسبة لتركيز القالب النظري. يوصى بالاحتفاظ بالمواد الطافية من خطوات الغسيل الثلاث (القسم 3.1) واستخدامها لإجراء تفاعلات النسخ. ستعطي هذه التجارب مؤشرا على مقدار قالب aptamer غير المنضم الموجود في الحل.
تتمثل إحدى المزايا الرئيسية لمنصة C-star في مرونتها ونمطيتها. كما هو موضح أعلاه وفي العمل السابق ، يمكن تصميم المكثفات للاستجابة لمجموعة من المدخلات ، مثل إزاحة الشريط بوساطة إصبع القدم ونسخ أبتامير الحمض النووي الريبي بشكل منفصل أو بالتسلسل. إلى جانب قابلية البرمجة المتأصلة في لبنات بناء الحمض النووي ، توفر نجوم الحمض النووي النانوية البرمائية حلا قويا ومتعدد الاستخدامات لتصميم وإعداد الخلايا الاصطناعية.
الإفصاحات
لم يتم الإعلان عن أي تضارب في المصالح.
شكر وتقدير
تقر LM و LDM و DT بالدعم المقدم من مجلس البحوث الأوروبي (ERC) في إطار برنامج البحث والابتكار Horizon 2020 (ERC-STG No 851667 - NANOCELL). تعترف LDM بالدعم المقدم من منحة أبحاث الجمعية الملكية للزملاء الباحثين (RGF / R1 / 180043) والدعم من زمالة أبحاث جامعة الجمعية الملكية (UF160152 ، URF / R / 221009).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.22 & مرشحات المحقنة M | Sigma-Aldrich | SLGVR33RB | |
| 24 × 60 مم # 1.5 نظارات غطاء مستطيلة ، Menzel Gl & auml ؛ ser | VWR | 631-0853 | |
| 2-Propanol | Sigma-Aldrich | 34683 | |
| 6 L منظف بالموجات فوق الصوتية مع مؤقت رقمي وحرارة ، 230 فولت تيار متردد | Cole-Parmer | WZ-08895-11 | |
| Araldite لاصق سريع 2 جزء من الإيبوكسي الغراء | RS | ARA-400005 | |
| Bio-Rad C1000 الحرارية cycler | Bio-Rad | 1851197 | |
| العلامة التجارية أنبوب الطرد المركزي الصغير 2 مل مع غطاء قفل | فيشر Scientific | 15338665 | 2 مل أنابيب الطرد المركزي الدقيقة لاستخراج المكثفات C-star |
| قلم الكتابة الماسي | RS | 394-217 | |
| ثنائي فلورو -4-هيدروكسي بنزيليدين إيميدازوليدينون (DFHBI) | سيجما ألدريتش | SML1627 | |
| ثنائي ميثيل سلفوكسيد (DMSO) | سيجما ألدريتش | 472301 | |
| إيبندورف بي سي آر نظيف عديم اللون أنابيب الطرد المركزي ذات القفل الآمن | فيشر ساينتفيك | 0030123301 | 0.5 مل أنابيب الطرد المركزي الدقيقة لإعداد مخاليط C-star |
| الإيثانول المطلق 99.8 +٪ | فيشر ساينتفيك | 10437341 | 70٪ الإيثانول يكفي لأغراض |
| التنظيف Fisherbrand ZX4 IR Vortex | Mixer Fisherbrand | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| معرف الشعيرات الدموية المستطيلة المجوفة 0.40 × 4.00 مم ، طول 50 مم | CM Scientific | 2540-50 | |
| زيت معدني | Sigma-Aldrich | 69794 | |
| جهاز طرد مركزي صغير ، 230 فولت | منشور (TM) | ||
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop One مقياس الطيف | الضوئي الحراري فيشر العلمي | ND-ONE-W | تستخدم لقياس امتصاص قليل النوكليوتيدات لحسابات التركيز ، |
| الحمض | النووي المتكاملة | وتعتبر تسلسلات قليل النوكليوتيدات المخصصة فريدة من نوعها لتصميم النجمة C المطلوبة. | |
| مثبط ScriptGuard RNase | CELLSCRIPT | C-SRI6310K | RNase مثبط |
| T7-FlashScribe Transcription Kit | Cambio | C-ASF3507 | |
| Tris-EDTA buffer ، محلول مخزون 100x | Sigma-Aldrich | 574793 | |
| UltraPure Free DNase / RNase الماء المقطر | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 | مساحات VWR | 21914-758 |
المراجع
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
إعادة الطباعة والأذونات
