لدراسة تطور اللغة ، من المهم مقارنة آليات الدماغ لدى البشر مع تلك الموجودة في الرئيسيات غير البشرية. لقد طورنا طريقة لقياس تخطيط كهربية الدماغ (EEG) للحيوانات المستيقظة بشكل غير جراحي. يسمح لنا بمقارنة بيانات EEG مباشرة بين البشر على المدى الطويل دون الإضرار بهم.
مقالة منهجية
قياسات تخطيط كهربية الدماغ في Marmosets مستيقظا الاستماع إلى أصوات محددة
في هذه المقالة
ملخص
الملخص
يلعب التواصل الصوتي دورا حاسما في التفاعلات الاجتماعية للقرود ، لا سيما في البقاء والتنظيم الاجتماعي. طور البشر استراتيجية اتصال صوتي فريدة ومتقدمة في شكل لغة. لدراسة تطور اللغة البشرية ، من الضروري التحقيق في الآليات العصبية الكامنة وراء المعالجة الصوتية لدى البشر ، وكذلك لفهم كيفية تطور آليات الدماغ من خلال مقارنتها بتلك الموجودة في الرئيسيات غير البشرية. هنا ، قمنا بتطوير طريقة لقياس تخطيط كهربية الدماغ (EEG) بشكل غير جراحي للرئيسيات غير البشرية المستيقظة. تسمح طريقة التسجيل هذه بإجراء دراسات طويلة الأجل دون الإضرار بالحيوانات ، والأهم من ذلك أنها تسمح لنا بمقارنة بيانات EEG غير البشرية مباشرة مع البيانات البشرية ، مما يوفر نظرة ثاقبة لتطور اللغة البشرية. في الدراسة الحالية ، استخدمنا طريقة تسجيل EEG لفروة الرأس للتحقيق في نشاط الدماغ استجابة للأصوات الخاصة بالأنواع في marmosets. تقدم هذه الدراسة رؤى جديدة باستخدام تخطيط كهربية الدماغ لفروة الرأس لالتقاط التمثيلات العصبية واسعة الانتشار في marmosets أثناء الإدراك الصوتي ، وسد الفجوات في المعرفة الحالية.
المقدمة
تستخدم الرئيسيات أصواتا خاصة بالأنواع لنقل معلومات مهمة بيولوجيا ، مثل الحالة العاطفية للمتصل أو نيته في الحفاظ على الروابط الاجتماعية ، أو وجود المفترسة ، أو المواقف الخطرة الأخرى. قد يزودنا التحقيق في الآليات العصبية الكامنة وراء إدراك النطق في الرئيسيات غير البشرية الغنية بالصوت بأدلة مهمة لفهم الأصول التطورية للغة البشرية بشكل أفضل.
marmosets الشائعة هي الرئيسيات الصغيرة الأصلية في أمريكا الجنوبية. في السنوات الأخيرة ، تم استخدام marmosets بشكل متزايد كحيوانات نموذجية ، جنبا إلى جنب مع المكاك ، بسبب إنتاجيتها العالية ، وسهولة استخدامها بسبب صغر حجمها ، وتطوير تقنيات معدلة وراثيا مفيدة1،2،3. بالإضافة إلى فائدتها كنماذج للمرض ، فإن التواصل الصوتي الغني داخل المجموعات هو سمة فريدة أخرى لهذا النوع4،5،6،7. تتبادل Marmosets بشكل روتيني الإشارات الصوتية للتواصل مع خصوصيات غير مرئية في الغابة. من خلال فحص نشاط الدماغ المتضمن في الإدراك الصوتي والإنتاج في marmosets ، يمكننا تحديد كيفية معالجة المعلومات السمعية الخاصة بهم أو المكالمات المحددة في الدماغ وتحديد الدوائر العصبية المعنية. أظهرت الدراسات السابقة نشاطا عصبيا في القشرة السمعية الأولية8،9،10،11،12 والقشرة الأمامية13،14 تشارك في الإنتاج الصوتي في marmosets. علاوة على ذلك ، تم تعديل هذه الاستجابات العصبية المتحمسة والمكبوتة من خلال التفاعلات السمعية الصوتية في القشرة السمعية الأولية 8,10. قدمت هذه الدراسات بيانات مفصلة عن النشاط العصبي على مستوى الخلايا العصبية المفردة باستخدام طرق التسجيل الغازية. وقد درست العديد من الدراسات كذلك النشاط العصبي الذي ينطوي عليه الإنتاج الصوتي marmoset. ومع ذلك ، لا يزال الإدراك الصوتي غير مفهومبشكل جيد 15,16.
أوضحت العديد من دراسات تصوير الدماغ غير الغازية الآليات العصبية للمعالجة الصوتية في marmosets17،18،19. تعد دقتها المكانية العالية ميزة ، ومع ذلك ، فإن إبقاء في حالة اليقظة أثناء المسح يتطلب تقنيات متقدمة. ومع ذلك ، في الآونة الأخيرة ، حدد جعفري وآخرون المناطق الأمامية الصدغية المشاركة في الإدراك الصوتي في marmosets مستيقظا باستخدام التصوير بالرنين المغناطيسي الوظيفي (fMRI) 19. أجريت جميع التجارب تقريبا لتوضيح وظائف الدماغ المشاركة في الإدراك الصوتي والإنتاج لدى البشر باستخدام طرق غير جراحية ، مثل تخطيط كهربية الدماغ لفروة الرأس (EEG) ، وتخطيط الدماغ المغناطيسي (MEG) 20،21 ، و fMRI22،23،24. بحثت العديد من الدراسات التي أجريت على البشر في نشاط الدماغ المتعلق بالإدراك الصوتي باستخدام EEG. ركزت معظم هذه الدراسات على المعلومات العاطفية25،26،27 وبروز الكلمات العاطفية28 ، مع الكشف عن النتائج عن تغييرات في الإمكانات المتعلقة بالحدث أثناء الإدراك الصوتي29. تم إجراء تخطيط كهربية القلب (ECoG) وتسجيلات الخلايا العصبية المفردة باستخدام أقطاب كهربائية مزروعة داخل الجمجمة في البشر فقط في عدد محدود من التجارب على المرضى الذين يخضعون لعلاج جراحة الأعصاب30,31.
يعد المنظور التطوري الذي يقارن البشر بالقرود أمرا مهما عند فهم الآليات العصبية الفريدة الكامنة وراء الإدراك الصوتي والإنتاج الذي تطور لدى البشر. لمقارنة الآليات العصبية المشاركة في إدراك الكلام والنطق في الرئيسيات غير البشرية الغنية صوتيا ، مثل المرموسيت ، مع البشر ، من المهم مقارنة البيانات بين النوعين باستخدام نفس الطريقة. يسمح التصوير بالرنين المغناطيسي الوظيفي بتصوير الدماغ بالكامل وله دقة مكانية عالية. لديها ميزة تسجيل النشاط عموديا على الجمجمة أو في المناطق العميقة التي يصعب تسجيلها باستخدام EEG أو MEG. ومع ذلك ، فإن جهاز التصوير بالرنين المغناطيسي مكلف في التركيب والصيانة ، وهناك العديد من القيود على المنبهات التي يمكن تقديمها بسبب طبيعة الجهاز. وبالمقارنة ، فإن EEG والإمكانات المتعلقة بالأحداث (ERPs) و MEG لها دقة زمنية عالية ، مما يجعلها مفيدة لتحليل المعالجة الصوتية للسلاسل الزمنية. على وجه الخصوص ، يتمتع EEG بمزايا التنقل العالي والقدرة على استخدامه في مجموعة متنوعة من الإعدادات التجريبية ، والتكلفة المنخفضة نسبيا ، ومتطلبات مشغل واحد فقط.
نظرا لأنه تم بالفعل الحصول على كمية كبيرة من بيانات EEG في البشر ، فهناك حاجة إلى طرق قياس EEG باستخدام نماذج غير جراحية للرئيسيات غير البشرية. طورت مجموعتنا البحثية طريقة فريدة لتسجيل EEG غير الباضعة باستخدام الأنابيب32 لقرود المكاك والمرموسيت. هنا ، نبلغ عن العديد من النتائج الجديدة المتعلقة بالمعالجة السمعية في الرئيسيات غير البشرية33،34،35،36،37. لتوصيف نشاط الدماغ استجابة للأصوات الخاصة بالأنواع في marmosets ، قمنا ببناء نظام تجريبي لتسجيل نشاط الدماغ بشكل غير جراحي باستخدام أقطاب كهربائية موضوعة على فروة الرأس. في هذه الدراسة ، وصفنا طريقة قياس EEG ل marmosets.
البروتوكول
تمت الموافقة على جميع التجارب من قبل لجنة التجارب على في EHUB (رقم 2022-003 ، 2023-104) وأجريت وفقا لدليل رعاية واستخدام الرئيسيات المختبرية التي نشرتها EHUB. تم استخدام تسعة شائعة (Callithrix jacchus ، ستة ذكور وثلاث إناث ، 2-12 سنة ، وزنها 330-490 جم) للتجربة.
1.
- قم بإيواء المرموسيت في أقفاص مفردة مجهزة بصناديق عش ، وعلياء خشبية ، وأجهزة تخصيب أخرى.
- حافظ على الغرف تحت دورة 12 ساعة من الضوء والظلام ، مع الحفاظ على درجة الحرارة والرطوبة عند 28 ± 2 درجة مئوية و 40 ± 20٪ على التوالي.
- إطعام 14 غرام من كريات العالم الجديد مرتين في اليوم ، مع استكمال الطعام مثل الصمغ العربي وديدان الوجبة. توفير المياه الإعلانية.
- قم بإجراء جميع التجارب في صندوق مخفف للصوت في غرفة تجريبية.
2. المعدات (الشكل 1 ب وجدول المواد)
- استخدم أقطاب كهربائية فضية 4 مم. يمنع طلاء AgCl الموجود على سطح القطب الاستقطاب ويضمن التسجيل المستقر.
- استخدم مكبر للصوت لتسجيل إشارات EEG. مرشح تمرير النطاق (0.016-250 هرتز) وأخذ عينات من البيانات عند 1000 هرتز.
- قم بتوصيل صندوق إدخال قطب كهربائي مكون من 64 قناة بمكبر الصوت ، وضعه أمام الهدف.
- ضع السماعة على بعد 30 سم من رأس المرموسيت وتحكم في مستوى الصوت عند 65-75 ديسيبل ، كما تم قياسه في موضع الأذن. قم بتوصيل المحفزات السمعية عبر هذا السماعة.
- ضع الكاميرا أمام الهدف لمراقبة حالته أثناء تسجيل EEG.
- كرسي الرئيسيات مصنوع من ألواح الأكريليك وأعمدة الراتنج الاصطناعية. بالنسبة للتجارب ، اطلب من الباحث حمل أثناء جلوسها على صفيحة القدم. في هذه المرحلة ، أدخل قطعة عنق وثبتها على لوحة الرقبة ، وقم بإدخال قطعة الخصر وتثبيتها على لوحة الخصر. تأكد من أن كامل جسم كل مارموسيت مؤمن بشكل فضفاض.
3. التخدير
- تخدير بالحقن العضلي للفاكسالون (6-8 ملغم/كغم) والأتروبين (0.05 ملغم/كغم). يسمح هذا البروتوكول بالحفاظ على التخدير لمدة 20 دقيقة تقريبا. تطبيق جرعات إضافية من الفاكسالون لإطالة مدة التخدير إذا كان الإجراء أطول. يجب أيضا تطبيق العوامل المضادة للقىء (Maropitant 1 ملغ/كغ، الحقن تحت الجلد) مسبقا لمواجهة الغثيان، وهو أحد الآثار الجانبية لعقار ألفاكسالون.
ملاحظة: يجب أن يكون Marmosets تحت التخدير عن طريق الحقن أو الاستنشاق أثناء الإجراءات ويجب السماح له بالتعافي فورا بعد حلاقة الشعر. - راقب العناصر الحيوية باستخدام مقياس التأكسج النبضي وقم بتطبيق خليط الأكسجين والهواء (O2 0.5 لتر / دقيقة ، الهواء 0.5 لتر / دقيقة) إذا لزم الأمر.
- حافظ على درجة حرارة الغرفة فوق 27 درجة مئوية ، ولف قطعة قماش دافئة حول جسم المرموسيت لمنع انخفاض حرارة الجسم.
4. إزالة الشعر
- حلق الرأس بالكامل (بما في ذلك خلف الأذن) باستخدام ماكينة حلاقة كهربائية.
- ضعي كريم إزالة الشعر على البشرة الحساسة. امسح الكريم بشاش مبلل بعد 5 دقائق.
5. إعداد قناع
- قم بمعالجة قناع لدن بالحرارة مسبقا ليناسب حجم كرسي. على وجه التحديد ، قم بحفر جزء الظهر الذي يبرز من الطول الرأسي للكرسي بأربعة ثقوب لولبية بحيث يمكن تثبيته على لوحة عنق الكرسي.
ملاحظة: أقنعة اللدائن الحرارية آمنة ويمكن استخدامها لشل حركة الرأس أثناء العلاج الإشعاعي لدى المرضى. استخدمنا قناعا صغيرا مصمما للأطفال وقطعناه ليناسب حجم المرموسيت. يلين هذا القناع عند وضعه في ماء دافئ عند 75 درجة مئوية ويتصلب مع انخفاض درجة الحرارة عند إزالته من الماء. - للتجارب ، ضع على كرسي الرئيسيات. دعم المخدر باستخدام لوحات الرقبة والخصر وتأمين وهذه اللوحات على الكرسي.
- قم بتسخين القناع بالماء الساخن ثم قم بتشكيله ليناسب رأس المرموسيت. بعد إزالة القناع من الماء الدافئ ، انتظر حتى تنخفض درجة الحرارة (تقريبا في نطاق 50 درجة مئوية) لمنع الحروق ، ثم ضعه على رأس الشخص لتشكيل القناع.
- بعد التبريد والتصلب ، افصل القناع عن واقطع الجزء العلوي من أجزاء الرأس والأذن من القناع لفضح المنطقة لإعداد القطب.
ملاحظة: بمجرد صنع هذا القناع ، يمكن استخدامه على أفراد آخرين.
6. تكييف الكرسي والقناع (30 دقيقة / يوم لمدة 3 أيام)
- تعويد على الكرسي في ظل ظروف مستيقظة عن طريق وضعه على كرسي ومكافأته لمدة 30 دقيقة تقريبا. كرر هذا الإجراء لمدة 3 أيام.
- تعويد على تثبيت الرأس باستخدام القناع لمدة 2 أيام.
ملاحظة: تم تخصيص عملية التكيف هذه وفقا لحالة الفرد. بعد التكيف ، قد تقاوم مؤقتا أثناء وضع الالتقاط وقناع الرأس ، ولكن بمجرد جلوسها على الكرسي وتثبيت رأسها ، تصبح هادئة. - أثناء تكيف الكرسي ، قم بتقييم المعلمات السلوكية التالية: أ) انبعاث أصوات قلقة أو مزعجة ، ب) رفض المكافأة المقدمة ، و ج) حركات عنيفة. إذا لوحظ أي من هذه السلوكيات ، فقم بإنهاء الجلسة لذلك اليوم ، مما يسمح للمارموسيت بالتكيف تدريجيا مع البيئة التجريبية.
7. تسجيل EEG (2 ساعة / يوم)
- إعداد الموضوع
- قم بتوصيل قفص نقل بنافذة صغيرة من قفص المنزل وانقل المرموسيت من قفص المنزل إلى قفص النقل ، عادة بمفرده. قم بتغطية قفص الحمل بقطعة قماش ونقله إلى الغرفة التجريبية.
- تثبيت الرأس
- التقاط marmoset باستخدام قفازات واقية ووضعها في كرسي خاص.
- ضع القناع المحضر على رأس المرموسيت. مرر جسم المسمار المتصل بالكرسي من خلال الفتحة الموجودة في القناع وقم بإصلاحه باستخدام مسامير الإبهام.
- ثبت الرأس والقناع برفق باستخدام شريط أسفل الصدر مباشرة.
ملاحظة: لم يكن رأس الشخص بحاجة إلى أن يكون ثابتا تماما طالما لم تتم إزالة الأقطاب الكهربائية عن طريق الحركة. لذلك ، استخدمنا نفس القناع في جميع المواد.
- تعريف موقع الأقطاب الكهربائية
- استخدم nasion و inion وشحمة الأذن كمعالم تشريحية لتحديد موقع الأقطاب الكهربائية وفقا للطريقة الدولية 10-2032،33،34،35،36،37. قم بقياس المسافة بين nasion و inion في خط المنتصف باستخدام شريط قياس. حدد موقع Cz في منتصف المسافة. ضع الأقطاب الكهربائية الأخرى (Fz أو Pz أو Oz أو F3 أو F4) مع 20٪ من طول النيون النيون كتباعد بين القطب. ضع علامة على مواضع القطب على فروة الرأس باستخدام جهاز تصوير الجلد القائم على الزيت.
- إعداد الجلد
- افركي المنطقة المحددة بقطعة قطن رقيقة مغموسة في الكحول المحمر لإزالة الأوساخ والزهم من فروة الرأس.
- إعدادات القطب
ملاحظة: قم بتنفيذ الخطوات من 7.2.1 إلى 7.2.3 في جميع مواضع الأقطاب الكهربائية لوضع الأقطاب الكهربائية في Fz و Cz و C3 و C4 و Pz و A1 و A2 و F3 (أو F4).- باستخدام قاطع الأنبوب ، قم بقطع قطعة من أنابيب السيليكون بقطر داخلي 4 مم وقطر خارجي 7 مم بطول 20 مم تقريبا.
- ضع مادة لاصقة على حواف الأنبوب المقطوع وألصقها بفروة الرأس.
- املأ الجزء الداخلي من الأنبوب بجل EEG باستخدام حقنة وإبرة حقنة غير مدببة.
- قم بتوصيل القطب المرجعي ب Pz والأقطاب الكهربائية الأرضية ب F3 أو F4 (الشكل 1C).
- أدخل أقطاب كهربائية في الأنبوب وقم بتوصيل كابل القطب بصندوق الإدخال.
- قم بتشغيل تطبيق تسجيلات EEG لقياس مقاومة القطب ، وضبط المعلمات للتأكد من أن جميع الأقطاب الكهربائية أقل من 5 كيلو أوم.
- قم بتجميع كابلات القطب لتقليل الضوضاء.
- أعط مكافآت أثناء إجراء تثبيت الرأس وبين جلسات العمل عن طريق إعطاء 1-3 مل يدويا من المكافأة السائلة (العلكة أو التغذية) باستخدام حقنة.
- حدد الملف المراد حفظه على برنامج تسجيل EEG واضغط على زر بدء التسجيل . قم بتشغيل البرنامج النصي لعرض التحفيز مباشرة بعد بدء تسجيل EEG. اضغط على زر الإيقاف في تسجيل EEG عند اكتمال تنفيذ البرنامج النصي لعرض التحفيز لإنهاء جميع التسجيلات. عند اكتمال التسجيل ، قم بإزالة الأقطاب الكهربائية وقناع الرأس.
- القبض على وإعادتها إلى أقفاص حملها. اترك الأنابيب على فروة الرأس. سقطت جميع الأنابيب بشكل طبيعي في حوالي 1 يوم.
ملاحظة: في الفترات المبكرة ، استخدمنا الأسيتون لإذابة الغراء اللاصق وإزالة الأنبوب بعد جلسات التسجيل ؛ ومع ذلك ، كانت هناك حالات إصابة جلدية. لذلك ، أعدنا بعد ذلك إلى أقفاصهم المنزلية دون إزالة الأنبوب. في عشرات التجارب التي أجريناها حتى الآن ، لم تظهر أي اهتمام بالأنابيب التي تمت إزالتها ، ولم يحدث أي ابتلاع عرضي على الإطلاق. - التحفيز
- سجل المكالمات الطبيعية البسيطة والمركبة في الغرفة الأسيرة أو التجريبية من marmosets التي لا تستخدم في تسجيلات EEG اللاحقة. قم باستخراج ثلاث مكالمات بسيطة ومركبة خاصة بالأنواع (مكالمات Phee و Tsik-Ek و Tsik-String5 ) من الملفات المسجلة.
- بالإضافة إلى محفزات الاتصال ، قم بإنشاء ضوضاء بيضاء باستخدام وظيفة في برنامج البرمجة واستخدمها كحافز.
- لاتباع هذا البروتوكول ، استخدم ثلاثة ملفات سمعية (16 بت ، 48 كيلو هرتز) لمكالمات marmoset في التجربة. التحكم في المهمة باستخدام برنامج نصي مخصص.
ملاحظة: تحتوي كل كتلة على 50 مكالمة لكل محفز ، ليصبح المجموع 200 مكالمة. ستستمر كل كتلة تسجيل حوالي 10 دقائق. يجب على كل مشارك أداء كتلتين. الفاصل الزمني بين المكالمات هو 3 ثوان. من بين ملفات التحفيز الصوتي الأربعة (انظر الملف التكميلي 1) ، كان طول حافز استدعاء Phee حوالي 2 ثانية ، بينما كان طول الثلاثة الأخرى حوالي 1 ثانية. كان هذا لأن مكالمة Phee واحدة لا تزال مكالمة طويلة الأمد (الشكل 1D). - في كل ملف تحفيز صوتي ، تحتوي القناة اليمنى على مكالمة marmoset أو بيانات الضوضاء ، وتحتوي القناة اليسرى على إشارة الزناد لبداية التحفيز. أرسل إشارة الزناد هذه إلى نظام تسجيل EEG عبر جهاز مزامنة وقم بتسجيلها كوقت للحدث.
8. تحليل البيانات
ملاحظة: تم استخدام الكود الأصلي المكتوب في برنامج البرمجة وصندوق الأدوات لمعالجة بيانات EEG ، كما هو موضح أدناه (الملف التكميلي 2) 37.
- تجهيزها
- إعادة الإشارة إلى مرجع الأذن المرتبط.
- مرشح الترددات العالية عند 2 هرتز.
- الحقبة من 100 مللي ثانية قبل إلى 1000 مللي ثانية بعد بداية التحفيز.
- خط الأساس الصحيح لمتوسط فترة التحفيز 100 مللي ثانية. رفض القطع الأثرية باستخدام معيار ±150 μV.
- تخطيط الإمكانات المتعلقة بالحدث (ERP)
- متوسط جميع بيانات التجربة لكل موضوع.
- احصل على أشكال موجية متوسطة للمجموعة عن طريق حساب متوسط جميع الموضوعات.
- لمقارنة متوسط ERPs بين أنواع المكالمات ومحفزات الضوضاء ، قم بتطبيق تحليل أحادي الاتجاه للتباين (ANOVA) مع المحفزات كعامل بين الموضوعات في استجابة Cz.
- تطبيق تحليل المقارنة المتعددة بعد مخصص مع طريقة توكي.
- تخطيط الاضطراب الطيفي المرتبط بالحدث (ERSP)
- احسب ERSP لتصور متوسط التغير المرتبط بالحدث في القدرة الطيفية بمرور الوقت في نطاق تردد واسع باستخدام المعادلة (1). Fk (f,t) هو التقدير الطيفي للتجربة k عند التردد f والوقت t:
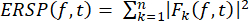 (1)
- تطبيق تحلل التردد الزمني على الأنشطة باستخدام تحويلات المويجات الجيبية ، مع ثلاث دورات من الطول عند أدنى تردد (10 هرتز) ، وزيادة خطيا بتردد يصل إلى 32 دورة عند أعلى تردد (120 هرتز).
- حدد الاستجابات الأولية والعابرة في فترة 150 مللي ثانية بعد بداية التحفيز عند 2-30 هرتز ، والاستجابات المستمرة في فترة 800 مللي ثانية من 151 إلى 950 مللي ثانية بعد بداية التحفيز عند 40-100 ساعة.
- لاختبار الاختلافات في الاستجابات الأولية والمستدامة في Fz و Cz بين أعمار الموضوعات وأنواع المكالمات ، قم بإجراء ANOVA ثنائي الاتجاه باستخدام نوع المكالمة كعامل داخل الموضوع والأعمار كعامل بين الموضوع.
- احسب ERSP لتصور متوسط التغير المرتبط بالحدث في القدرة الطيفية بمرور الوقت في نطاق تردد واسع باستخدام المعادلة (1). Fk (f,t) هو التقدير الطيفي للتجربة k عند التردد f والوقت t:
النتائج
أولا ، رسمنا متوسط الإمكانات المرتبطة بالحدث (ERPs) لكل محفز سمعي في marmosets (الشكل 2). كانت الإمكانات السمعية المستثارة (AEP) بارزة في حالة الضوضاء ، مما يعكس البداية الواضحة للمنبهات (انظر الشكل 1 د). لمقارنة متوسط ERPs بين أنواع المكالمات ومحفزات الضوضاء ، قمنا بتطبيق تحليل أحادي الاتجاه للتباين (ANOVA) مع المحفزات كعامل بين الموضوعات في استجابة تشيكوسلوفاكيا. وجدنا تأثيرا رئيسيا كبيرا للمنبهات على نشاط تشيكوسلوفاكيا عند 13-18 مللي ثانية و 28-36 مللي ثانية و 45-88 مللي ثانية بعد بداية التحفيز ، على التوالي (p < 0.05). أظهر تحليل المقارنة المتعددة اللاحقة باستخدام طريقة Tukey أن الفرق كان بين الضوضاء والمكالمات الأخرى (p < 0.05) ، ولكن لم يكن هناك فرق بين أنواع مكالمات marmoset. تشير النتيجة إلى أنه لا يمكن ملاحظة الاختلافات في نشاط الدماغ حسب نوع المكالمة من الإمكانات المرتبطة بالحدث وحدها.
بعد ذلك ، أجرينا تحليل التردد الزمني لكل موضوع. يوضح الشكل 3 مثالا على خرائط التردد الزمني لنداء سلسلة Tsik التي تم الحصول عليها بواسطة الموضوع R (الأكبر ، الشكل 3A) والموضوع Y (الأصغر سنا ، الشكل 3B). وجدنا أن القدرة الطيفية المرتبطة بالحدث زادت عند تردد أقل من حوالي 20-50 هرتز مباشرة بعد بداية التحفيز. وقد لوحظت هذه الردود بشكل بارز في تشيكوسلوفاكيا. في المقابل ، انخفضت قوة نطاق جاما (أكثر من 30 هرتز) بعد بداية التحفيز مقارنة بفترة خط الأساس. بالإضافة إلى ذلك ، استمر هذا الانخفاض لمدة 1 ثانية. لم يلاحظ أي انخفاض في القوة المرتبطة بالحدث لدى الأفراد الأكبر سنا على مدى 8 سنوات. في هذه الأمثلة ، كان لدى الأفراد الأكبر سنا استجابة أولية أقوى للمكالمة في منطقة الرأس (Cz) ، بينما أظهر الأفراد الأصغر سنا انخفاضا مستمرا في نشاط النطاق γ أثناء عرض المكالمة. تشير النتائج إلى وجود اختلافات في الاستجابات الأولية والمستمرة اعتمادا على عمر الموضوع.
أخيرا ، قمنا بالتحقيق في العلاقة بين عمر الموضوع وقوة الاضطراب الطيفي المرتبط بالحدث (ERSP) في الاستجابة العابرة الأولية (الشكل 4 أ) والاستجابة المستدامة (الشكل 4 ب). تم إجراء ANOVA ثنائي الاتجاه مع نوع التحفيز كعامل داخل الموضوع والعمر كعامل بين الموضوع لتحديد مساهمة نوع التحفيز السمعي وعمر الشخص في نشاط EEG. أظهرت الاستجابات الأولية العابرة في Fz تأثيرات رئيسية كبيرة لنوع التحفيز (F (3,24) = 9.020 ، p < 0.001) والعمر (F (8,24) = 3.934 ، p = 0.004). ومع ذلك ، لم يكن هناك تفاعل كبير بين نوع التحفيز والعمر (p = 0.144). في الاستجابات العابرة في تشيكوسلوفاكيا ، كان هناك تأثير رئيسي كبير لنوع التحفيز (F (3,24) = 8.533 ، p < 0.001) ، ولكن لم يكن هناك تأثير للعمر (F (8,24) = 2.215 ، p = 0.073) ، ولا يوجد تفاعل (p = 0.228). بالنسبة للاستجابات المستدامة ، كانت هناك تأثيرات رئيسية كبيرة لكل من نوع التحفيز والعمر (F (3,24) = 9.020 ، p < 0.001; F (8,24) = 3.934 ، p = 0.004 ، على التوالي) على Fz. لم يلاحظ أي تفاعل كبير (P = 0.144). أظهرت الاستجابات المستمرة في تشيكوسلوفاكيا تأثيرا رئيسيا معنويا لنوع التحفيز (F (3,24) = 8.533 ، p < 0.001) ولكن لا يوجد تأثير رئيسي للعمر (F (8,24) = 2.215 ، p = 0.073) أو التفاعل (p = 0.228). تشير هذه النتائج إلى أنه في منطقة منتصف الجبهي (Fz) ، تباينت الاستجابات الأولية العابرة لمحفزات المكالمات والضوضاء بشكل كبير مع زيادة العمر ، وتم قمع الاستجابات المستمرة في الفئات العمرية الأصغر سنا. قد تعكس هذه النضج الوظيفي للمنطقة الأمامية.
أبلغت الدراسات الفسيولوجية العصبية السابقة عن استجابات عصبية في القشرة السمعية الأولية أثناء النطق في marmosets 9,38. بالإضافة إلى ذلك ، يظهر أكثر من نصف هذه الخلايا العصبية استجابة مثبطة تستمر أثناء النطق 9,38. علاوة على ذلك ، أظهرت الدراسات الفيزيولوجية الكهربية السابقة في الرئيسيات غير البشرية والبشر أن نشاط نطاق جاما العالي في إمكانات المجال المحلي (LFP) و ECoG يرتبط جيدا بمعدلات إطلاق في الخلايا العصبية39،40،41،42. تخطيط كهربية الدماغ لفروة الرأس هو نسخة ملساء زمانيا مكانيا من LFP ، مدمجة على مساحة 1 سم2 أو أكثر43. على الرغم من أن مكون جاما العالي في EEG له علاقة أقل بمعدلات إطلاق النار من LFP و ECoG ، إلا أنه يعتقد أنه يرمز إشارة الخرج كنطاق متكامل من عدة سنتيمترات. لذلك ، فإن الانخفاض المستمر في قوة نطاق جاما الذي لوحظ في تشيكوسلوفاكيا في تجاربنا قد يعكس نشاط المجموعات العصبية التي تظهر نشاطا مكبوتا أثناء انبعاث المكالمات ، والذي يوجد في القشرة السمعية. في المقابل ، أفادت الدراسات الفيزيولوجية الكهربية السابقة أن المزيد من الخلايا العصبية في القشرة الأمامية ، وخاصة في القشرة قبل الحركية ، تظهر استجابات مثيرة أثناء نطقالمكالمات 13. ومن المثير للاهتمام ، لوحظ نشاط مثبط مستمر حتى عندما تم وضع Fz في المنطقة الأمامية في تجاربنا ، على الرغم من ملاحظة آليات عصبية مميزة بين الإدراك الصوتي والإنتاج. حددت دراسة حديثة للتصوير بالرنين المغناطيسي الوظيفي العديد من المناطق الفرعية في القشرة الأمامية ، بما في ذلك القشرة الحزامية الأمامية وكذلك القشرة قبل الحركية ، على أنها "بقع صوتية" تستجيب للنداءات الخاصة بالأنواع في marmosets19. تعكس نتائجنا نشاط الدماغ الكلي في هذه المناطق.
في التجربة الحالية ، استخدمنا فقط مواضع خط الوسط لأقطاب الاستكشاف (Fz و Cz و Pz و Oz) ؛ لذلك ، لا يمكننا ذكر أي اختلافات بين نشاط EEG الأيمن والأيسر للمعالجة السمعية. في المستقبل ، نحتاج إلى التحقيق في الجانب الجانبي للنشاط العصبي الكامن وراء المعالجة الصوتية.
أفادت الدراسات السابقة أن نشاط جاما المنخفض في LFP و ECoG يتم إنشاؤه بواسطة مدخلات متشابكة للخلايا الهرمية. وبالتالي ، فإن نشاط جاما المرتفع يعكس مكون إشارة أقرب إلى الخرج ، في حين أن نشاط جاما المنخفض يعكس تلك الأقرب إلى المدخلات39. في هذه الدراسة ، لاحظنا نشاطا عابرا في نطاقات بيتا ومنخفضة جاما مباشرة بعد التعرض لمكالمة. قد تعكس هذه الاستجابات إشارات الإدخال الحسية إلى القشرة. ميزة طريقتنا هي أنها يمكن أن تلتقط نشاط الدماغ من مجموعات عصبية مختلفة كتغيرات ديناميكية بدقة زمنية عالية. على حد علمنا ، هذه هي الدراسة الأولى التي تكشف عن كيفية تغير إشارات EEG لفروة الرأس أثناء الإدراك الصوتي الخاص بالأنواع في marmosets. توفر النتائج الحالية رؤى جديدة حول تكامل التمثيلات العصبية من خلال تسجيلات مجموعة واسعة من مناطق الدماغ.
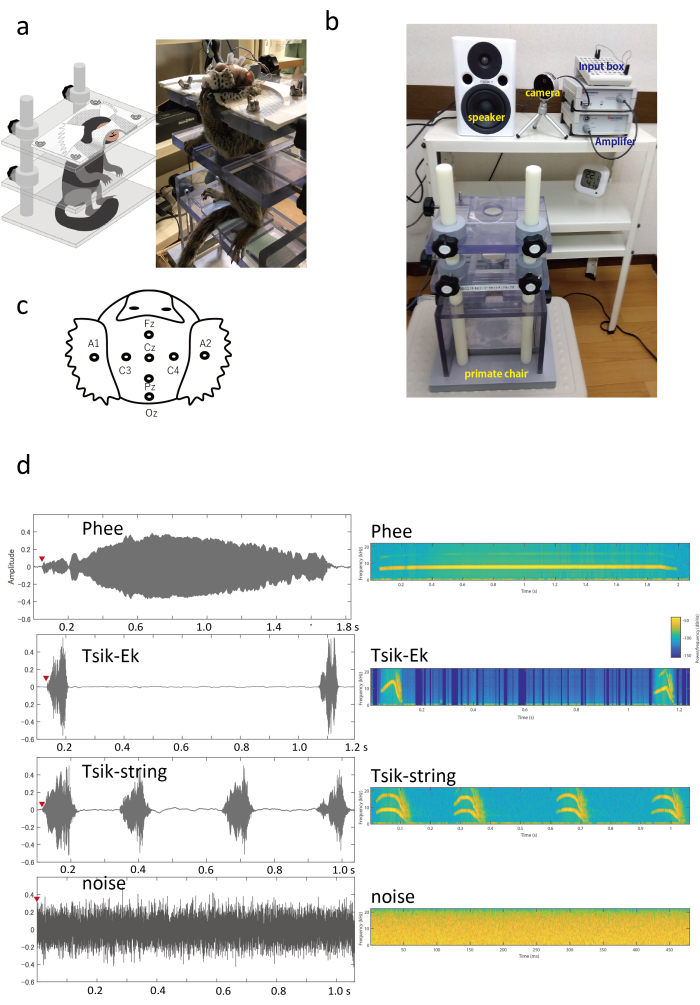
الشكل 1: الإعداد التجريبي. أ: صورة نموذجية لموضوع أثناء التسجيل. يجلس المرموسيت على كرسي ويتم تثبيت الرأس على الكرسي بواسطة قناع. يتم الحفاظ على الفم مفتوحا لتسهيل التنفس وشرب سوائل المكافأة ، وتم توصيل الأقطاب الكهربائية بأعلى الرأس. (ب) المعدات: يتم تقديم المحفزات الصوتية من خلال مكبر صوت. كما تم تركيب مكبر للصوت وصندوق إدخال قطب كهربائي وكاميرا مراقبة. (ج) موقع الأقطاب الكهربائية: تم وضع الأقطاب الكهربائية على Fz و Cz و Pz و Oz و A1 و A2 وفقا للنظام الدولي 10-20. حددنا موقع الأقطاب الكهربائية باستخدام نقاط inion و nasion والنقاط preauricular الثنائية كمعالم تشريحية. تم استخدام القطب C3 أو C4 كقطب كهربائي أرضي. (د) الموجات فوق الصوتية (اللوحة اليسرى) ومخططات الطيف (اللوحة اليسرى) لجميع المحفزات الصوتية. مكالمة Phee هي مكالمة واحدة طويلة تدوم أقل من 2 ثانية. مكالمة Tsik-Ek هي مكالمة مركبة من Tsik متبوعة ب Ek. قدمت مجموعتان من المكالمة المركبة حوالي 1 ثانية. نداء سلسلة Tsik هو نداء متكرر ل Tsik5 ، وتم تقديم أربعة Tsik تقريبا لمدة 1 s في التحفيز. كحافز بدون استدعاء ، استخدمنا إشارة ضوضاء بيضاء تم إنشاؤها بواسطة برنامج نصي مخصص استمر حوالي 1 ثانية. تم فحص زمن انتقال بداية الصوت بصريا على محرر صوت رقمي. تشير الأسهم الحمراء إلى كل زمن انتقال ، واستدعاء Phee 49 مللي ثانية ، واستدعاء Tsik-Ek 35 مللي ثانية ، واستدعاء سلسلة Tsik 16 مللي ثانية ، والضوضاء البيضاء 0 مللي ثانية. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
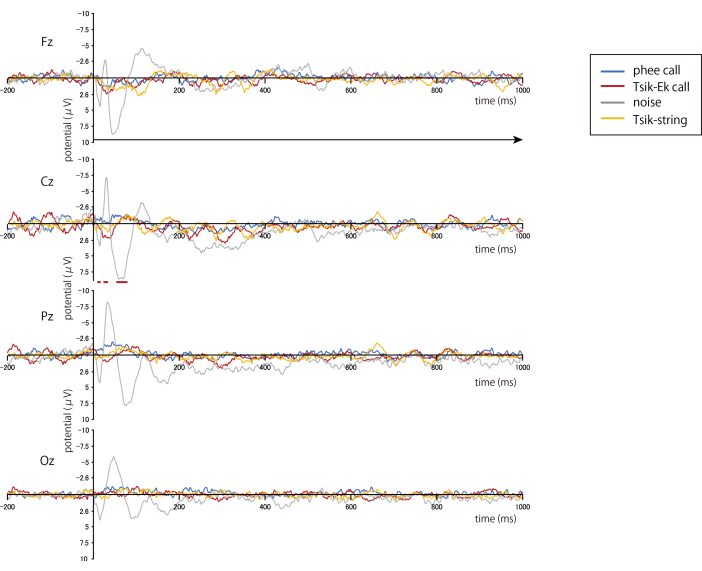
الشكل 2: المتوسط الكلي للإمكانات المتعلقة بالحدث لمكالمات وضوضاء سلسلة Phee و Tsik-Ek و Tsik . (ن = 9) تمت محاذاة النشاط مع بداية كل مكالمة أو ضوضاء بيضاء. يشير السهم الأفقي الأسود إلى فترة عرض التحفيز. استمرت مكالمة Phee لمدة 2 ثانية تقريبا ، واستمر الباقي لمدة 1 ثانية. تشير الخطوط الأفقية الحمراء عند Cz إلى الفترات ذات الاختلافات الكبيرة بين المنبهات السمعية. كل هذه كانت بين الضوضاء والمكالمات الأخرى ، ولم تكن هناك اختلافات بين المكالمات. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
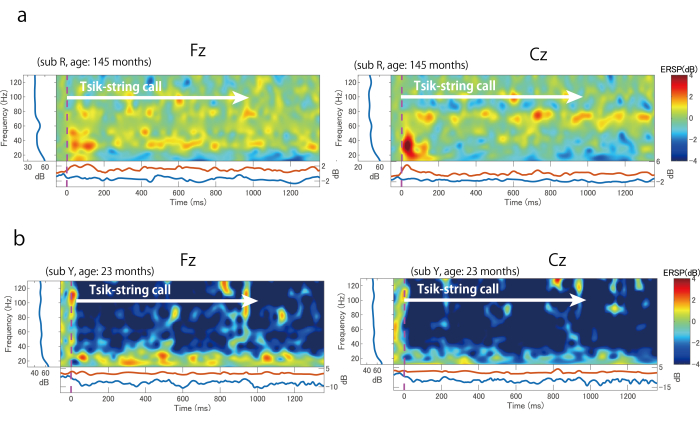
الشكل 3: مثال على خرائط التردد الزمني للمكالمات. (أ) خريطة ERSP لنداء سلسلة Tsik في الموضوع R (عمره 145 شهرا) ؛ (ب) خريطة EPSP لنفس استدعاء سلسلة Tsik في الموضوع Y (23 شهرا). تظهر اللوحات اليمنى واليسرى البيانات المسجلة من قطبي Fz و Cz ، على التوالي. تشير الخطوط الرأسية الحمراء إلى توقيت بداية الملف السمعي ، وليس بداية المكالمة. الاختصار: EPSP = الاضطراب الطيفي المرتبط بالحدث. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
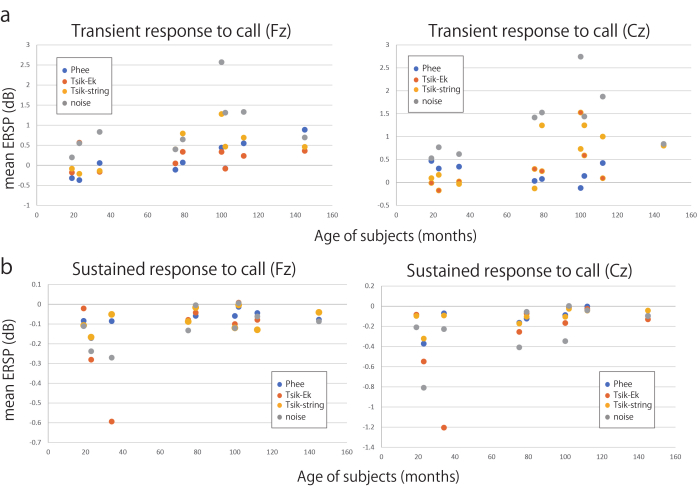
الشكل 4: العلاقة بين متوسط القوة المرتبطة بالحدث وعمر الأشخاص. (أ) العلاقة بين متوسط القدرة المرتبطة بالحدث عند α والنطاق β وعمر الأشخاص. تم حساب متوسط قدرة ERSP عند 8-29 هرتز من فترة 1-150 مللي ثانية من كل بداية تحفيز مقارنة بتلك الموجودة في فترة خط الأساس (-200 إلى 0 مللي ثانية قبل بداية التحفيز). تظهر اللوحات اليمنى واليسرى البيانات المسجلة من قطبي Fz و Cz ، على التوالي. (ب) العلاقة بين متوسط القدرة المرتبطة بالحدث في النطاق γ وعمر الأشخاص. تم حساب متوسط قدرة ERSP عند 30-100 هرتز من فترة 151-950 مللي ثانية من كل بداية تحفيز مقارنة بتلك الموجودة في فترة خط الأساس (-200 إلى 0 مللي ثانية قبل بدء التحفيز). وبالتالي ، تشير قيم ERSP السلبية إلى انخفاض في الطاقة مقارنة بما كان عليه قبل عرض التحفيز. الاختصار: ERSP = الاضطراب الطيفي المرتبط بالحدث. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
الملف التكميلي 1: ملف مضغوط يحتوي على أربعة ملفات صوتية مستخدمة في التجارب. يتضمن ملف PH.wav حافزا مع مكالمة Phee طويلة واحدة. يحتوي TE.wav على مكالمتين Tsik-Ek مع فاصل زمني بينهما ؛ يحتوي MB.wav على تحفيز نداء سلسلة Tsik مع أربعة Tsik متتالية (وتسمى أيضا مكالمة المهاجمة) ؛ يحتوي NO.wav على ضوضاء غاوسية بيضاء تم إنشاؤها بواسطة البرنامج. الرجاء الضغط هنا لتنزيل هذا الملف.
الملف التكميلي 2: ملف مضغوط يحتوي على رمز المعالجة اللاحقة. الرجاء الضغط هنا لتنزيل هذا الملف.
المناقشة
نقاط يجب ملاحظتها حول التخدير
تمت محاولة إعطاء كل من الكيتامين والزيلازين ، وعلى الرغم من أنها مسكنة وبالتالي مناسبة للمهام المؤلمة الطويلة ، تميل المرموسيت إلى تجربة انخفاض في مستويات الأكسجين في الدم دون استنشاق الأكسجين44. باختصار ، ربما يكون alfaxalon هو الأنسب للمهام غير المؤلمة مثل الحلاقة أو صنع الأقنعة. بالإضافة إلى ذلك ، بالنسبة للحلاقة ، التي تستغرق 10-15 دقيقة فقط ، سيكون التخدير بالاستنشاق هو الأنسب. لم يتم استخدام الإيزوفلوران أثناء التنبيب بسبب قصر مدته وتركيزه المنخفض (حوالي 1٪).
مزايا قياس تخطيط كهربية الدماغ
تخطيط كهربية الدماغ لفروة الرأس هو طريقة لتسجيل نشاط الدماغ من خلال الجلد والجمجمة والأنسجة تحت الجلد ، والتي تتميز بدقة مكانية أقل من طرق التسجيل التي تستهدف الخلايا العصبية المفردة أو الأقطاب الكهربائية داخل الجمجمة بدقة مكانية أعلى. على الرغم من هذه العيوب ، هناك العديد من المزايا لقياس تخطيط كهربية الدماغ لفروة الرأس في الرئيسيات غير البشرية. أولا ، الطريقة غير جراحية ولا تؤذي. على سبيل المثال ، قد يرغب المرء في قياس نشاط الدماغ لنماذج حيوانية قيمة للغاية لمرض تم إنشاؤه باستخدام إجراء هندسة وراثية صعب للغاية. في مثل هذه الحالات ، يمكن استخدام هذه التقنيات بأمان لقياس نشاط الدماغ دون الحاجة إلى تدخل جراحي. في الواقع ، مكنتنا هذه الطريقة من الحصول على بيانات عصبية من نفس الموضوع على مدى فترة طويلة دون إصابة. بالإضافة إلى ذلك ، يمكن زيادة عدد الأشخاص مقارنة بالطرق الفسيولوجية العصبية الغازية لأنها أسهل وأقل استهلاكا للوقت. ثانيا ، يمكن مقارنة بيانات EEG التي تم الحصول عليها من الرئيسيات غير البشرية باستخدام هذه التقنية مباشرة مع بيانات EEG البشرية التي تم الحصول عليها مسبقا باستخدام نفس النموذج السلوكي مثل البشر. سمحت لنا هذه الميزة بفحص النشاط العصبي المعرفي من منظور تطوري. ثالثا ، تسمح طريقة التسجيل الخاصة بنا بالتسجيلات من الرئيسيات المستيقظة. عوامل التخدير تخفف بشكل كبير من النشاط القشري ، على الرغم من أن آثار التوهين ودرجة ونمط التثبيط تختلف تبعا للعوامل. يمكن لهذه الطريقة تسجيل نشاط الدماغ أثناء الاستيقاظ ، دون أي تأثير للأدوية. علاوة على ذلك ، من خلال إعطاء الأدوية التي تعمل على الجهاز العصبي المركزي ومراقبة التغيرات في نشاط الدماغ ، يمكن تطبيق هذه التقنية في التجارب التي تنطوي على آليات عصبية.
التصوير الوظيفي للدماغ هو طريقة أخرى غير جراحية لاستكشاف آليات الدماغ المرتبطة بالمعالجة الصوتية في البشر والرئيسيات غير البشرية. مكنت التطورات التكنولوجية الحديثة من تطبيق التصوير بالرنين المغناطيسي الوظيفي في في حالة اليقظة. يتميز التصوير الوظيفي للدماغ بميزة السماح باستكشاف الدماغ بالكامل بدقة مكانية عالية. ومع ذلك ، فإن المعدات وتكاليف تشغيلها باهظة الثمن للتركيب والصيانة. على العكس من ذلك ، يتمتع EEG بميزة الدقة الزمنية العالية ويكشف عن نشاط دماغي أكثر ديناميكية خاصة بالتردد. بالإضافة إلى ذلك ، فإن الجهاز لديه تكلفة منخفضة نسبيا وقابلية عالية ويمكن تنفيذه بواسطة مجرب واحد. علاوة على ذلك ، يمكن إدخال العديد من المحفزات والمعدات بسهولة. إن الاستفادة من هذه الأساليب ودمج النتائج من التقنيات المختلفة سيوفر فهما أكثر تفصيلا للآليات العصبية المشاركة في الإدراك الصوتي في marmosets.
مقارنة مع البيانات البشرية أو بيانات المكاك
في EEG ، يجب أن تمر الإشارات المتولدة في الدماغ عبر الأم الجافية والأنسجة تحت الجلد والجمجمة قبل تسجيلها على فروة الرأس. تعمل هذه الأنسجة كمرشحات منخفضة التردد. على وجه الخصوص ، يتم تخفيف المكونات عالية التردد مثل المسامير بشكل كبير مقارنة بمكونات نطاق ألفا وبيتا. لذلك ، على عكس تخطيط كهربية القلب (ECoG) ، لا يمكن اكتشاف بعض مكونات نشاط الدماغ على فروة الرأس. هذا هو الحد من تخطيط كهربية الدماغ لفروة الرأس. تحتوي Marmosets على جماجم أرق وأنسجة تحت الجلد وأم الجافية من المكاك والبشر ، في حين أن حجم الرأس أصغر أيضا. لذلك ، يجب توخي الحذر عند مقارنة النتائج التي تم الحصول عليها في البشر المكاك. على سبيل المثال ، يمكن تسجيل الإشارات التي تنشأ في الدماغ العميق ، مثل جذع الدماغ ، على فروة الرأس كإشارات كبيرة نسبيا بسبب انخفاض معدل التوهين والمسافة القريبة نسبيا بين مصدر الإشارة والأقطاب الكهربائية.
بالإضافة إلى ذلك ، تحتوي marmosets على عدد قليل جدا من التلم الدماغي الضحل ، إن وجد. هذا يجعلهم متميزين تماما عن البشر ، الذين لديهم الكثير من التلم ، والذين يتم استيعاب القشرة مثل التلفيف. يختلف عدد وعمق التلم الدماغي بين البشر المكاك والمارموسيت. يتم إنشاء الإشارات الكهربائية بشكل عمودي على القشرة ويتم قياسها باستخدام أقطاب كهربائية موضوعة فوق الدوران الدماغي ، حيث يتم محاذاة التشعبات القمية للخلايا العصبية الهرمية ، والتي تعد المصادر الرئيسية لإشارات EEG ، بشكل عمودي على الأقطاب الكهربائية. في التلم ، يتم تخفيف الإشارات وإسقاطها على أقطاب كهربائية بعيدة لأنها تتولد أفقيا فيما يتعلق بسطح الدماغ. عند مقارنة النتائج في البشر مع تلك الموجودة في المكاك والمارموسيت ، من الضروري مراعاة موقع تسجيلات EEG وتشريح المنطقة.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للكشف عنه.
شكر وتقدير
تم دعم هذا العمل من قبل مشروع هاكوبي بجامعة كيوتو ، ومنحة المعونة للبحوث الصعبة (الرائدة) (رقم 22K18644) ، ومنحة المعونة للبحث العلمي (C) (رقم 22K12745) ، ومنحة المعونة للبحث العلمي (B) (رقم 21H02851) ، ومنحة المعونة للبحث العلمي (A) (رقم 19H01039). نود أن نشكر Editage (www.editage.jp) على تحرير اللغة الإنجليزية.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| الفاكسالون | ميجي صحة | الفاكسان | |
| مكبر للصوت | منتجات الدماغ | BrainAmp | |
| الأتروبين | فوسو الصناعات الدوائية حقن | كبريتات الأتروبين | |
| محرر الصوت | Adobe | Adobe Audition | |
| برنامج معالجة البيانات | MathWorks | MATLAB | الإصدار R2023a |
| مجموعة أدوات معالجة البيانات | جامعة كاليفورنيا-سان دييغو | EEGLAB | |
| صندوق أدوات معالجة البيانات | جامعة كاليفورنيا - ديفيس | ERPLAB | |
| ماكينة حلاقة كهربائية | باناسونيك | ER803PPA | |
| قطب كهربائي فريد من نوعه الطبي | UL-3010 | AgCl مطلي (مخصص) | |
| هلام القطب الكهربائي | Neurospec AG | V16 SuperVisc | |
| صندوق إدخال القطب الكهربائي | منتجات الدماغ | EIB64-DUO | 64ch |
| الغراء | 3M | سكوتش 7005S | |
| كريم إزالة الشعر | Kracie | epilat للبشرة | |
| Isoflurane | Bussan Animal Health | ds isoflurane | |
| Liquid | Gum San-ei Yakuhin Boeki | Arabic Call SS | Gum Arabic + Water |
| Liquid Nutrition | نستلé شركة العلوم الصحية | Isocal 1.0 جونيور | بوليمرية الصيغة |
| Maropitant | Zoetis | عن طريق الحقن | |
| مراقبة الكاميرا | Intel | RealSense LiDAR كاميرا L515 | |
| الكريات | الخميرة الشرقية | SPS | |
| كرسي الرئيسيات | Natsume Seisakusho | النظام جعل | |
| مقاييس التأكسج النبضي | Covident | Nellcor | PM10N |
| Skin Prepping المعكرونة | Mammendorfer Institut fü r Physik und Medizin | NeuPrep | |
| Slicon tube | AsONE | & Phi ؛ 4 × 7 مم | |
| مكبر صوت | Fostex | PM0.3 | |
| جهاز التزامن | رؤية الدماغ | StimTrak | |
| قناع اللدائن الحرارية | CIVCO | MTAPU نوع قناع لدن بالحرارة أحادي الإطار 2.4 مم |
المراجع
- Miller, C. T., et al. Marmosets: A neuroscientific model of human social behavior. Neuron. 90 (2), 219-233 (2016).
- Okano, H., Hikishima, K., Iriki, A., Sasaki, E. The common marmoset as a novel animal model system for biomedical and neuroscience research applications. Semin Fetal Neonatal Med. 17 (6), 336-340 (2012).
- t'Hart, B. A., Abbott, D. H., Nakamura, K., Fuchs, E. The marmoset monkey: a multi-purpose preclinical and translational model of human biology and disease. Drug Discov Today. 17 (21-22), 1160-1165 (2012).
- Bezerra, B. M., Souto, A. Structure and usage of the vocal repertoire of Callithrix jacchus. Int J Primatol. 29 (3), 671-701 (2008).
- Agamaite, J. A., Chang, C. J., Osmanski, M. S., Wang, X. A quantitative acoustic analysis of the vocal repertoire of the common marmoset (Callithrix jacchus). J Acoust Soc Am. 138 (5), 2906-2928 (2015).
- Pistorio, A. L., Vintch, B., Wang, X. Acoustic analysis of vocal development in a New World primate, the common marmoset (Callithrix jacchus). J Acoust Soc Am. 120 (3), 1655-1670 (2006).
- Grijseels, D. M., Prendergast, B. J., Gorman, J. C., Miller, C. T. The neurobiology of vocal communication in marmosets. Ann N. Y. Acad Sci. 1528 (1), 13-28 (2023).
- Eliades, S. J., Wang, X. Neural substrates of vocalization feedback monitoring in primate auditory cortex. Nature. 453 (7198), 1102-1106 (2008).
- Eliades, S. J., Wang, X. Comparison of auditory-vocal interactions across multiple types of vocalizations in marmoset auditory cortex. J Neurophysiol. 109 (6), 1638-1657 (2013).
- Eliades, S. J., Wang, X. Contributions of sensory tuning to auditory-vocal interactions in marmoset auditory cortex. Hear Res. 348, 98-111 (2017).
- Eliades, S. J., Wang, X. Neural correlates of the lombard effect in primate auditory cortex. J Neurosci. 32 (31), 10737-10748 (2012).
- Tsunada, J., Wang, X., Eliades, S. J. Multiple processes of vocal sensory-motor interaction in primate auditory cortex. Nat Commun. 15 (1), 3093(2024).
- Miller, C. T., Thomas, A. W., Nummela, S. U., de la Mothe, L. A. Responses of primate frontal cortex neurons during natural vocal communication. J Neurophysiol. 114 (2), 1158-1171 (2015).
- Roy, S., Zhao, L., Wang, X. Distinct neural activities in premotor cortex during natural vocal behaviors in a New World Primate, the common marmoset (Callithrix jacchus). J Neurosci. 36 (48), 12168-12179 (2016).
- Wang, X., Merzenich, M. M., Beitel, R., Schreiner, C. E. Representation of a species-specific vocalization in the primary auditory cortex of the common marmoset: temporal and spectral characteristics. J Neurophysiol. 74 (6), 2685-2706 (1995).
- Zeng, H. -h, et al. Distinct neuron populations for simple and compound calls in the primary auditory cortex of awake marmosets. National Science Review. 8 (11), nwab126(2021).
- Sadagopan, S., Temiz-Karayol, N. Z., Voss, H. U. High-field functional magnetic resonance imaging of vocalization processing in marmosets. Sci Rep. 5, 10950(2015).
- Kato, M., et al. Individual identity and affective valence in marmoset calls: in vivo brain imaging with vocal sound playback. Anim Cogn. 21 (3), 331-343 (2018).
- Jafari, A., et al. A vocalization-processing network in marmosets. Cell Rep. 42 (5), 112526(2023).
- Papanicolaou, A. C., et al. Differential brain activation patterns during perception of voice and tone onset time series: a MEG study. Neuroimage. 18 (2), 448-459 (2003).
- Capilla, A., Belin, P., Gross, J. The early spatio-temporal correlates and task independence of cerebral voice processing studied with MEG. Cereb Cortex. 23 (6), 1388-1395 (2012).
- Belin, P., Zatorre, R. J., Lafaille, P., Ahad, P., Pike, B. Voice-selective areas in human auditory cortex. Nature. 403 (6767), 309-312 (2000).
- Perrodin, C., Kayser, C., Abel, T. J., Logothetis, N. K., Petkov, C. I. Who is that? Brain networks and mechanisms for identifying individuals. Trends Cogn Sci. 19 (12), 783-796 (2015).
- Pernet, C. R., et al. The human voice areas: Spatial organization and inter-individual variability in temporal and extra-temporal cortices. Neuroimage. 119, 164-174 (2015).
- Chen, X., Pan, Z., Wang, P., Zhang, L., Yuan, J. EEG oscillations reflect task effects for the change detection in vocal emotion. Cogn Neurodyn. 9 (3), 351-358 (2015).
- Hiyoshi-Taniguchi, K., et al. EEG correlates of voice and face emotional judgments in the human brain. Cogn Comput. 7 (1), 11-19 (2015).
- Lévêque, Y., Schön, D. Listening to the human voice alters sensorimotor brain rhythms. PloS One. 8, e80659(2013).
- Liu, T., et al. Electrophysiological insights into processing nonverbal emotional vocalizations. NeuroReport. 23, 108-112 (2012).
- Bruneau, N., et al. Early neurophysiological correlates of vocal versus non-vocal sound processing in adults. Brain Res. 1528, 20-27 (2013).
- Flinker, A., et al. Single-Trial speech suppression of auditory cortex activity in humans. J Neurosci. 30, 16643-16650 (2010).
- Greenlee, J. D. W., et al. Human auditory cortical activation during self-vocalization. PloS One. 6 (3), e14744(2011).
- Itoh, K., Konoike, N., Iwaoki, H., Igarashi, H., Nakamura, K. A novel "dip-in electrode" method for electrode application to record noninvasive scalp electroencephalograms and evoked potentials in an awake common marmoset. Neuroimage: Reports. 2 (3), 100116(2022).
- Itoh, K., et al. Cerebral cortical processing time is elongated in human brain evolution. Sci Rep. 12 (1), 1103(2022).
- Itoh, K., Nejime, M., Konoike, N., Nakamura, K., Nakada, T. Evolutionary elongation of the time window of integration in auditory cortex: macaque vs. human comparison of the effects of sound duration on auditory evoked potentials. Front Neurosci. 13, 630(2019).
- Itoh, K., Iwaoki, H., Konoike, N., Igarashi, H., Nakamura, K. Noninvasive scalp recording of the middle latency responses and cortical auditory evoked potentials in the alert common marmoset. Hear Res. 405, 108229(2021).
- Itoh, K., Nejime, M., Konoike, N., Nakada, T., Nakamura, K. Noninvasive scalp recording of cortical auditory evoked potentials in the alert macaque monkey. Hear Res. 327, 117-125 (2015).
- Konoike, N., et al. Comparison of noninvasive, scalp-recorded auditory steady-state responses in humans, rhesus monkeys, and common marmosets. Sci Rep. 12 (1), 9210(2022).
- Eliades, S. J., Miller, C. T. Marmoset vocal communication: Behavior and neurobiology. Dev Neurobiol. 77 (3), 286-299 (2017).
- Ray, S., Hsiao, S. S., Crone, N. E., Franaszczuk, P. J., Niebur, E. Effect of stimulus intensity on the spike-local field potential relationship in the secondary somatosensory cortex. J Neurosci. 28 (29), 7334-7343 (2008).
- Leonard, M. K., et al. Large-scale single-neuron speech sound encoding across the depth of human cortex. Nature. 626 (7999), 593-602 (2024).
- Dubey, A., Ray, S. Comparison of tuning properties of gamma and high-gamma power in local field potential (LFP) versus electrocorticogram (ECoG) in visual cortex. Sci Rep. 10 (1), 5422(2020).
- Ray, S., Crone, N. E., Niebur, E., Franaszczuk, P. J., Hsiao, S. S. Neural correlates of high-gamma oscillations (60-200 Hz) in Macaque local field potentials and their potential implications in electrocorticography. Journal Neurosci. 28 (45), 11526-11536 (2008).
- Buzsáki, G., Anastassiou, C. A., Koch, C. The origin of extracellular fields and currents--EEG, ECoG, LFP and spikes. Nat Rev Neurosci. 13 (6), 407-420 (2012).
- Konoike, N., Miwa, M., Ishigami, A., Nakamura, K. Hypoxemia after single-shot anesthesia in common marmosets. J Med Primatol. 46 (3), 70-74 (2017).
إعادة الطباعة والأذونات
