هنا ، يتم وصف طريقة كروماتوغرافيا السائل ذات المرحلة العادية وعالية الأداء لاكتشاف وتحديد كمية الرتينويدات الحرجة المشاركة في تسهيل الوظيفة البصرية في كل من أنسجة العين والجهازية ، في سياق إمدادات فيتامين أ الجهازية لتوليد كروموفور رودوبسين الحساس للضوء 11-رابطة الدول المستقلة الشبكية.
مقالة منهجية
التحليل الكمي لمستقلبات فيتامين أ الغذائية في أنسجة العين وغير العينية في الفئران باستخدام كروماتوغرافيا سائلة عالية الأداء
في هذه المقالة
ملخص
الملخص
المستقبلات المقترنة ببروتين G (GPCRs) هي عائلة فائقة من البروتينات عبر الغشاء التي تبدأ شلالات الإشارات من خلال تنشيط بروتين G الخاص بها عند الارتباط بالترابط. في جميع رؤى الثدييات ، فإن رودوبسين هو GPCR المسؤول عن بدء سلسلة التنبيغ الضوئي. داخل المستقبلات الضوئية ، يرتبط رودوبسين بالكروموفور 11-cis-retinal ويتم تنشيطه من خلال الأيزومرة الحساسة للضوء من 11-cis-retinal إلى All-trans-retinal ، والتي تنشط بروتين Transducin G ، مما يؤدي إلى سلسلة النقل الضوئي.
في حين أن النقل الضوئي مفهوم جيدا ، فإن العمليات التي تشارك في توفير سلائف فيتامين أ الغذائية لتوليد 11-رابطة الدول المستقلة في العين ، وكذلك الأمراض التي تؤدي إلى تعطيل هذا الإمداد ، ليست مفهومة تماما بعد. بمجرد امتصاص سلائف فيتامين أ في الأمعاء ، يتم تخزينها في الكبد على شكل استرات الريتينيل ويتم إطلاقها في مجرى الدم كجميع الريتينول المرتبط بالبروتين 4 المرتبط بالريتينول (RBP4). سيتم امتصاص RBP4-retinol الدورة الدموية من قبل الأعضاء الجهازية ، مثل الكبد والرئتين والكلى والعين. ومن ثم ، فإن طريقة القياس الكمي لنواتج الأيض المختلفة لفيتامين أ الغذائي في العين والأعضاء الجهازية أمر بالغ الأهمية لدراسة وظيفة رودوبسين GPCR المناسبة.
في هذه الطريقة ، نقدم طريقة استخراج وتحليل شاملة لتحليل فيتامين أ في أنسجة الفئران. من خلال تحليل الكروماتوغرافيا السائلة عالية الأداء في المرحلة العادية ، يمكن اكتشاف جميع الأيزومرات ذات الصلة من الريتينالديهايد والريتينول واسترات الريتينيل في وقت واحد من خلال تشغيل واحد ، مما يسمح بالاستخدام الفعال للعينات التجريبية ويزيد من الموثوقية الداخلية عبر مستقلبات فيتامين أ المختلفة داخل نفس العينة. باستخدام هذه الطريقة الشاملة ، سيتمكن الباحثون من تقييم إمدادات فيتامين أ الجهازية بشكل أفضل في وظيفة رودوبسين GPCR.
المقدمة
تعد المستقبلات المقترنة ببروتين G (GPCRs) واحدة من أكثر فصيلة البروتينات المعروفة دراسة وتميزا. في وظيفتها الأكثر شهرة ، تعمل GPCRs كمستقبل لسطح الخلية في نقل الإشارة ، وتهيئة الاستجابات داخل الخلايا عند الارتباط برابط معين. تتميز GPCRs بسبعة مجالات حلزونية عبر الغشاء (TM) وستة مجالات حلقة إجمالية. من بين الحلقات الست ، يتم توجيه ثلاث حلقات خارج الخلية لتسهيل ربط الترابط ، بينما تقترن الحلقات الثلاث الأخرى داخل الخلايا ببروتين G غير متجانس يتكون من الوحدات الفرعية Gα و Gβ و Gγ1،2.
تصنف GPCRs إلى عدة فئات ، بما في ذلك الفئة أ شبيهة بالرودوبسين ، وعائلة مستقبلات سيكرتين من الفئة ب ، والغلوتامات من الفئة C ، ومستقبلات فرمون التزاوج الفطري من الفئة D ، ومستقبلات AMP الدورية من الفئة E ، والفئة F المجعد / المنعم3،4. كما يوحي اسمها ، تشتمل الفئة الفرعية من الفئة A الشبيهة بالرودوبسين GPCR على رودوبسين ، GPCR الحرج المسؤول عن النقل الضوئي والوظيفة البصرية. يحتوي رودوبسين على جميع الخصائص الرئيسية ذات الصلة والعناصر الهيكلية الموجودة في النموذج الكنسي ل GPCRs ، بما في ذلك المجالات الحلزونية السبعة المذكورة سابقا TM ، والحلقات الستة خارج الخلية وداخل الخلايا ، والارتباط ببروتين G غير المتجانس ، المعروف أيضا باسم transducin (Gt) في المستقبلات الضوئية1،5،6،7. داخل جيب ربط رودوبسين ، يرتبط 11-cis-retinal ، وهو رابط الكروموفور الحساس للضوء ، بالرودوبسين على ليسين 296 من خلال ارتباط قاعدة Schiff التساهمية ، وبالتالي تشكيل 11-cis-retinylidene1،8. عند امتصاص الفوتون ، يتحول 11-cis-retinylidene الضوئي إلى جميع الريتينيلدين ، مما يؤدي إلى تغيير توافقي داخل رودوبسين. لذلك ، فإن ترابط الشبكية 11-رابطة الدول المستقلة أمر بالغ الأهمية لوظيفة رودوبسين GPCR ، ويجب الحفاظ على إمدادات قوية وفعالة من 11-CIS-retinal بشكل مستمر للتغلب على معدل الدوران المرتفع داخل المستقبلات الضوئية.
تنتمي الريتينالديهايدات مثل 11-cis-retinal إلى مجموعة من الجزيئات تسمى مجتمعة الريتينويدات ، ويشار إلى الرتينويدات ذات الصلة بيولوجيا على نطاق واسع باسم فيتامين أ. تتميز الريتينويدات بمجموعة نهاية دورية متصلة بسلسلة بولين مترافقة ، مع مجموعة نهاية قطبية في الطرف الآخر. الريتينالديهايد والفيتامينات المرتبطة به من فيتامين أ ليست استثناء من هذا التوصيف ، والتي تحتوي على حلقة β-ionone كمجموعة نهاية دورية ، وسلسلة بولين ثنائي تيربين ، ومجموعة نهاية قطبية مختلفة اعتمادا على الفيتامين ، أي مجموعة الألدهيد للريتينالديهايد ، ومجموعة الهيدروكسيل للريتينول ، ومجموعة الكربوكسيل لأحماض الريتينويك ، ورابطة الإستر لاسترات الريتينيل ، إلخ (الشكل 1) 9،10.
لا تستطيع الثدييات تصنيع فيتامين أ دي نوفو ، لكن النباتات يمكنها ؛ لذلك ، يجب أن تنشأ جميع الرتينويدات داخل أنظمة الثدييات من النظام الغذائي للمنتجين النباتيين إلى المستهلكين في السلسلة الغذائية. في النموذج المتعارف عليه لعملية التمثيل الغذائي لفيتامين أ ، يتم امتصاص β-كاروتين ، وهو بروفيتامين أ النموذجي النموذجي ، في الخلايا المعوية المعوية من خلال مستقبلات الزبال من الفئة B ، العضو 1 (SCARB1) ، المنقسمة إلى جزيئين من جميع الشبكية عبر شبكية بواسطة β-كاروتين أوكسجيناز 1 (BCO1 / BCMO1) ، والذي يرتبط ببروتين ربط الريتينالديهايد 2 (RBP2) ويتم اختزاله إلى كل المتحولة- الريتينول بواسطة نازعة هيدروجين الريتينول (RDH) ، يتم تحويله إلى استرات الريتينيل بواسطة الليسيثين ريتينول أسيل ترانسفيراز (LRAT) ، ثم يتم إرساله إلى مجرى الدم في الكيلوميكرون11،12،13،14. من ناحية أخرى ، تعمل استرات الريتينيل ، مثل بالميتات الريتينيل ، كبروفيتامين أ السائد من مصادر حيوانية. يتم تحلل بالميتات الريتينيل من تجويف الأمعاء إلى الريتينول بالكامل بواسطة الكربوكسيل ستيراز 1 (CES1) وينتشر في الخلايا المعويةالمعوية 15. الكبد هو الجهاز الأساسي للتخزين والاستتباب لتوازن فيتامين أ ، والذي يمتص استرات الريتينيل داخل هذه الكيلومكرونات ، والتي يتم تحللها إلى جميع الريتينول المرتبط بالبروتين الخلوي المرتبط بالريتينول 1 (CRBP1) بواسطة هيدرولاز إستر الريتينيل ، ويدخل الخلايا النجمية الكبدية ويتم تحويله مرة أخرى إلى استرات الريتينيل بواسطة LRAT للتخزين13،16 ، 17. للحفاظ على مستوى التماثل لفيتامين أ في الكائن الحي ، يطلق الكبد فيتامين أ في شكل ريتينول متحول بالكامل مرتبط بمركب نقل المصل ، يتكون من بروتين مرتبط بالريتينول 4 (RBP4) وترانسثيريتين (TTR) 15،18،19. سيشار إلى هذا المجمع باسم holo-RBP4 في هذه المخطوطة.
لاستخدام هذا الإمداد الجهازي بفيتامين أ في الدم ، يجب أن يكون للأنسجة الجهازية ، بما في ذلك أنسجة العين حيث يتم الحفاظ على مصدر قوي لفيتامين أ ، طريقة لامتصاص holo-RBP4 في الأنسجة. داخل شبكية العين الغنية بالمستقبلات الضوئية في أنسجة العين ، فإن المستقبل الغشائي الذي يحفزه حمض الريتينويك 6 (STRA6) هو الناقل المتورط في هذه الوظيفة. في الدراسات الميكانيكية ، ثبت أن STRA6 قادر على تسهيل تناول الريتينول خارج الخلية من holo-RBP4 إلى RPE20. سيدخل هذا الريتينول المستورد بالكامل بعد ذلك في الدورة البصرية ، وهي العملية التي يتم من خلالها تحويل الريتينول المتحول بالكامل إلى شبكية 11-رابطة الدول المستقلة داخل RPE والجزء الخارجي للمستقبل الضوئي ، وبالتالي تسهيل الوظيفة البصرية عند ربطها بالرودوبسين9،21.
بمجرد أن يعبر الريتينول المتحول بالكامل من الدورة الدموية holo-RBP4 حاجز الشبكية الدموي إلى RPE داخل أنسجة العين من خلال STRA6 ، يتم استيرات الريتينول المتحول بالكامل في RPE أولا إلى استرات الريتينيل بواسطة LRAT ، ثم تحلل إلى 11-cis-retinol بواسطة بروتين 65 كيلو دالتون الخاص بظهارة الشبكية (RPE65). ثم يتم تحويل 11-CIS-retinol إلى 11-CIS-Retinal بواسطة نازعة هيدروجين الريتينول 5. ثم يتم نقل هذا الشبكية 11-رابطة الدول المستقلة إلى الجزء الخارجي للمستقبلات الضوئية (OS) بواسطة البروتين المرتبط بالريتينويد بين المستقبلات الضوئية (IRBP) 9،21. داخل الشبكة الإندوبلازمية التي تحيط بنواة المستقبلات الضوئية داخل الطبقة النووية الخارجية (ONL) ، يتم تصنيع opsin GPCRs ونقلها عبر الأهداب المتصلة (CC). البروتينات الحركية التي تشارك في هذا النقل عبر CC مثيرة للجدل ، لكن الفرضيات الحالية تورط في كينيسين والنقل داخل السوط القائم على الداينين (IFT) أو النقل القائم على الميوسين على أنه ميسر محتمل لهذه العملية14،22،23،24،25،26. بمجرد أن يلتقي هذان المكونان داخل الأقراص الغشائية داخل نظام التشغيل ، يتشكل 11-cis-retinal و opsin 11-cis-retinylidene من خلال الارتباط التساهمي الأساسي Schiff في lysine 196 على rhodopsin ، جاهز للنقل الضوئي8.
في حين أن التعبير عن STRA6 داخل RPE لشبكية العين يساعد في تسهيل تناول الريتينول المتحول بالكامل من holo-RBP4 ، لم يتم العثور على STRA6 يتم التعبير عنه في الكبد ، على الرغم من دوره كعضو استتبابي رئيسي لفيتامين أ وإظهار القدرات في تناول جميع الريتينول المتحولة من holo-RBP415،19،27،28 ، 29،30،31. في النهاية ، تم اكتشاف مستقبل مماثل يسمى مستقبلات البروتين المرتبط بالريتينول 4 2 (RBPR2) ، مما يدل على القدرة على تناول جميع الريتينول المتحول من holo-RBP4 ، مثل STRA6 ، ولكن يتم التعبير عنه في الأنسجة الكبدية32.
لذلك ، فإن الفهم الكامل لدور رودوبسين في الوظيفة البصرية يتطلب فهما للعمليات البيولوجية التي تبلغ ذروتها في تجديد الصبغة البصرية. وهذا بدوره يرتبط ارتباطا وثيقا بالعمليات الموصوفة سابقا ، بما في ذلك استقلاب سلائف بروفيتامين أ ، والتخزين داخل الكبد ، وإطلاق holo-RBP4 بواسطة الكبد ، والامتصاص النهائي ل holo-RBP4 من خلال مستقبلات غشاء STRA6 و RBPR2. كما ذكرنا أعلاه ، تظل النماذج الحيوانية مثل الفئران واحدة من النماذج الرئيسية في دراسة مثل هذه العمليات. ومن ثم ، نود أن نقدم طريقة استخراج للريتينويدات في أنسجة الفئران ، بالإضافة إلى طريقة اللونيات السائلة عالية الأداء (HPLC) ذات المرحلة العادية التي يمكنها اكتشاف هذه الريتينويدات وتحديدها. باستخدام هذه الطرق ، يمكن تحليل الرتينويدات المهمة الموضحة أعلاه ، مثل رابطة الرتينويد 11-رابطة الدول المستقلة رودوبسين أو الريتينويد الناقل الرئيسي لجميع الريتينول ، في الأعضاء العينية والكبدية والجهازية. من خلال تقييم إمدادات الريتينويد في أنسجة الفئران ، يمكن تطوير فهمنا لحالات المرض والأمراض المتعلقة بالإمداد اللوجستي للريتينويدات.
إلى جانب العمل ككروموفور في الوظيفة البصرية من خلال الارتباط ب opsin GPCRs ، تلعب الرتينويدات أيضا دورا رئيسيا في إشارات خلايا الثدييات من خلال إشارات حمض الريتينويك ، والتي تسهلها عائلتان من المستقبلات النووية ، مستقبلات حمض الريتينويك (RARs) ومستقبلات الريتينويد X (RXRs) ، التي ترتبط مباشرة بالحمض النووي والنسخ الجيني المنظم33. تستخدم هاتان العائلتان أو المستقبلات الرتينويدات في شكل أحماض الريتينويك مثل الترابط. لقد ثبت أن RARs لها تقارب مع كل من حمض الريتينويك المتنقل وحمض 9-cis-retinoic ، في حين أن RXRs تعبر عن تقارب مع حمض الريتينويك 9-CIS-34،35 فقط. أحماض الريتينويك بكميات غير خاضعة للرقابة مسخة ، ويجب التحكم في إشارات حمض الريتينويك بإحكامشديد 36. يجب أن يحدث إنتاج أحماض الريتينويك للإشارات محليا وفي نقاط زمنية محددة للغاية للتطور السليم للأنسجة ، كما هو الحال في نمو الدماغ الخلفي والأطراف ، ولكن هناك أمثلة أخرى لا حصر لها تستخدم إشارات حمض الريتينويك37،38. داخل الخلايا المشاركة في إشارات حمض الريتينويك ، يتم تصنيع أحماض الريتينويك بواسطة مجموعتين من الإنزيمات ، نازعة هيدروجين الكحول / الريتينول (ADHs / RDHs) التي تسهل أكسدة الريتينول التي يتم تناولها بواسطة STRA6 أو RBPR2 إلى الريتينالديهايد ، ونازعات هيدروجين الريتينالديهايد (RALDHs) التي تسهل أكسدة الريتينالديهايد إلى أحماض الريتينويك39. على الرغم من عدم المشاركة في إشارات GPCR في حد ذاتها ، إلا أن أحماض الريتينويك موجودة كريتينويد حاسم يعمل أيضا كرابط لمستقبلات الإشارات.
على الرغم من عدم وصفها بالتفصيل هنا ، نود أن نعترف بالطرق التي تم إنشاؤها مسبقا للكشف عن الريتينويد باستخدام HPLC عبر سياقات مختلفة ، مثل أبحاث الغذاء ودراسة رودوبسين الميكروبي. تستخدم هذه الطرق أهدافا ومناهج مختلفة للكشف عن الريتينويد ، بما في ذلك استخدام تقنيات المرحلة العكسية التي تتطلب مراحل متنقلة أقل تقلبا وخطورة40،41،42 ، والكشف عن أحماض الريتينويك والأيزومرات المرتبطة بها40،41 ، والتنقية والاستخراج من مصادر بيولوجيةمختلفة 43. تركز طريقتنا بشكل خاص على الكشف عن بالميتات الريتينيل وأيزومرات الريتينالديهايد وأيزومرات الريتينول من أنسجة الثدييات. يجب النظر في بروتوكولات مختلفة إذا كانت حالة الاستخدام المقصودة تختلف عن هذا التطبيق المحدد.
البروتوكول
ملاحظة: تمت الموافقة على جميع التجارب على من قبل اللجنة المؤسسية لرعاية واستخدامه (IACUC) بجامعة مينيسوتا (البروتوكول # 2312-41637A) وتم إجراؤها وفقا لبيان ARVO لاستخدام في أبحاث طب العيون والرؤية. قم بإجراء جميع عمليات الاستخراج في الظلام ، تحت ضوء أحمر خافت للإضاءة. كن على دراية بالضوء المتبقي المنبعث من شاشات العدادات ومصابيح LED الملحقة.
1. الجيل القياسي للريتينويد الطيفي وتوليد المنحنى القياسي الخارجي
ملاحظة: قم بإعداد وعاء ثلج جاف للتخزين المؤقت للريتينويدات قبل التحليل باستخدام HPLC.
- قم بوزن كمية تعسفية ولكن مناسبة من الريتينويدات وحلها في مذيب مناسب للقياس الكمي من خلال القياس الطيفي.
ملاحظة: المذيب المفضل المستخدم في هذه الدراسة هو الإيثانول ، وقيم الامتصاصية المولية للريتينويد المذابة في الإيثانول مفصلة في الجدول 1. يجب استخدام الإيثانول اللامائي من الدرجة HPLC لإذابة المعايير والعينات. يشكل الإيثانول المنقى فقط من خلال التقطير خليطا أجيوتروبيا مع الماء ، يحتوي على ما يقرب من 4٪ من الماء من حيث الحجم. الماء غير قابل للامتزاج مع الطور المتحرك الهكسانوي وسيؤدي إلى ترطيب مرحلة السيليكا الثابتة ، مما يؤدي إلى تدهور العمود في نهاية المطاف. - باستخدام قانون Beer-Lambert والامتصاصية المولية للريتينويد ذي الصلة ، حدد تركيز المعيار المتولد (الجدول 1).
الامتصاص = الامتصاص المولي (ε) × تركيز المولار × طول المسار - قم بإجراء التخفيفات التسلسلية لإنشاء تركيزات يمكن أن تولد منحنى قياسيا ضمن نطاق القياس الكمي للأنسجة المطلوبة.
ملاحظة: كن على دراية بالقيود الأساسية لقانون Beer-Lambert ، مثل افتقاره إلى الصلاحية مع تركيزات عالية من التحليل. لتجنب هذه المشكلة ، يجب أن تتجنب معايير الريتينويد المخففة توليد قيم امتصاص أكبر من 1. بالنسبة لتطبيقاتنا في القياس الكمي للريتينول والريتينالديهايد في أعضاء الفئران ، وجدنا أن منحنى المعايرة الذي يتراوح بين 1-10 نانوغرام كان قادرا على تغطية الكميات النموذجية الموجودة. بالنسبة لقياس كمية بالميتات الريتينيل من كبد الفئران ، وجدنا أن منحنى المعايرة بنطاق 20-80 ميكروغرام كان قادرا على تغطية الكميات النموذجية الموجودة. - من خلال التغيير التدريجي لحجم الحقن من محلول المخزون الذي تم إنشاؤه مسبقا ، وبالتالي تغيير الكمية المحقونة من الريتينويد بشكل تدريجي ، قم بدمج القمم لإنشاء منحنى قياسي خارجي مناسب لقياس كمية الريتينويد حيث يتناسب تكامل الذروة طرديا مع كمية الريتينويد المحقون.
2. حصاد الأنسجة وجمع العينات
ملاحظة: قم بإعداد وعاء ثلج جاف للتخزين المؤقت للأنسجة قبل تجانس الأنسجة واستخراج الريتينويد. يتم تفصيل كميات حصاد الأنسجة الموصى بها في الجدول 2. لحساب الاختلافات في الريتينويد بسبب الاختلافات في محتوى الدم لكل نسيج ، يجب أن يتم استخراج الأنسجة على الفئران المغمورة بالكامل ، ويجب إكمال استخراج الدم على فئران منفصلة.
- قتل الفئران باتباع الإرشادات التي وضعتها البروتوكول الذي تمليه اللجنة المؤسسية لرعاية واستخدامها (IACUC) (اختناق ثاني أكسيد الكربون2 هنا).
- الدم: مباشرة بعد القتل الرحيم ، اقطع رأس الفئران بمقص ، واستنزاف الدم من الجذع الرئيسي للفئران في أنبوب سعة 1.5 مل.
- العين: باستخدام زوج من الملقط ، قم بإزالة العينين من الرأس المقطوع.
- الدماغ: باستخدام مقص صغير ، قم بقطع الرأس المقطوع وإزالة الدماغ باستخدام زوج من الملقط.
- الكلى والكبد والطحال والقلب والرئة: باستخدام مقص صغير ، قم بعمل شق في البطن ، واقطعه في الاتجاه العلوي على طول خط الوسط ، واقطع القص والقفص الصدري. قم بإزالة الأنسجة المكشوفة باستخدام زوج من الملقط.
3. تجانس الأنسجة
ملاحظة: إذا كان من المطلوب تحليل أقسام أصغر من الأعضاء ، كما هو الحال في الأعضاء الكبيرة (على سبيل المثال ، أنسجة الكبد أو الرئة) ، فيجب تجانس العضو بأكمله لتجنب الاختلافات في محتوى الريتينويد في أجزاء مختلفة من الأنسجة. بدلا من ذلك ، قم بتقسيم التجانس إذا كانت هناك رغبة في كميات أقل من الأنسجة. تم تفصيل مخطط للبروتوكول في الشكل 2. تم اقتباس هذا البروتوكول المعدل من كين ونابولي44.
- ضع الأنسجة في أنبوب طاحونة الأنسجة ، جنبا إلى جنب مع 50٪ محلول ملحي مثلج (0.9٪) و 50٪ ميثانول. انظر الجدول 2 لمعرفة الحجم المستخدم لكل نوع من أنواع الأنسجة.
- ضع المدقة في أنبوب المطحنة ، وقم بإجراء خمس دورات كاملة ببطء وبرفق مع المدقة للحصول على تجانس.
- نقل العينات إلى أنابيب 15 مل مباشرة بعد التجانس.
- أضف 2 مل من الميثانول واتركه لمدة 15 دقيقة في درجة حرارة الغرفة.
ملاحظة: إذا كان تحليل مشتقات أوكسيم الريتينالديهايد مطلوبا ، أضف 1 مل من 0.1 M هيدروكسيلامين هيدروكلوريد في 0.1 M HEPES (الرقم الهيدروجيني 6.5) (الشكل 1).
4. استخراج الريتينويد
تنبيه: الهكسان شديد الاشتعال وشديد التقلب وشديد السمية. يجب استخدام أجهزة التنفس المعتمدة من المعهد الوطني للسلامة والصحة المهنية (NIOSH) ، وحماية العين ، وقفازات البوتيل ، وغطاء الدخان عند التعامل مع الهكسان. عند تبخير الهكسان من العينات ، يوصى باستخدام شكل من أشكال جهاز دوران الهواء المحسن لمنع تراكم أبخرة المذيبات ، على سبيل المثال ، جهاز شفط الغطس.
- أضف 10 مل من الهكسان إلى الدوامة وخلط الأنبوب أفقيا لمدة 10 ثوان على الأقل.
ملاحظة: من الأهمية بمكان أن تختلط المراحل بالكامل. - الطرد المركزي خليط المتجانس / الهكسان لمدة 3 دقائق عند 1,000 × جم لتسهيل فصل الطور.
- قم بإجراء الاستخراج 2x لضمان الاستخراج الكلي للريتينويدات من المتجانس. كرر الخطوتين 4.1 و 4.2.
- اسحب طبقة الهكسان باستخدام ماصة وضع طبقة الهكسان في مجموعة منفصلة من الأنابيب الزجاجية سعة 15 مل للتبخر الفراغي.
ملاحظة: للتبخر ، استخدم أنابيب زجاجية سعة 15 مل لتجنب التصاق الرتينويدات بجدران الأنبوب. - باستخدام جهاز طرد مركزي فراغ ، تبخر الهكسان تماما.
5. إعادة التعليق وتحليل HPLC
ملاحظة: نظرا لأن نظام HPLC المستخدم في هذه المخطوطة كان نظام مضخة ثنائي ، فقد تم خلط المرحلة المتنقلة المكونة من أربعة مكونات مسبقا في زجاجة مفردة قبل التشغيل.
تنبيه: جميع المذيبات العضوية الأربعة المستخدمة في هذه الطريقة شديدة الاشتعال وشديدة التقلب وشديدة السمية. 1،4-ديوكسان عرضة لتكوين بيروكسيد متفجر عند التعرض للأكسجين. احتفظ بجميع الأوعية التي تحتوي على 1،4-ديوكسان مغلقة عندما لا تكون قيد الاستخدام. يجب استخدام أجهزة التنفس المعتمدة من المعهد الوطني للسلامة والصحة المهنية (NIOSH) ، وحماية العين ، وقفازات البوتيل ، وغطاء الدخان عند التعامل مع هذه المذيبات. أثناء تشغيل هذه المذيبات في HPLC ، يوصى باستخدام شكل من أشكال جهاز دوران الهواء المحسن لمنع تراكم أبخرة المذيبات ، على سبيل المثال ، جهاز شفط الغطس.
- أعد تعليق الأنبوب المجفف سعة 15 مل مع 100 ميكرولتر من الهكسان ؛ دوامة جيدا للتأكد من إذابة جميع الرتينويدات.
- ماصة كل 100 ميكرولتر من الهكسان في ملحق زجاجي واحد لتحليل HPLC.
- إعداد تشغيل HPLC (مقتبس من Landers and Olson45): المرحلة المتنقلة: 85.4٪ هكسان (حجم / حجم) ، 11.2٪ أسيتات إيثيل (حجم / حجم) ، 2٪ ديوكسان (حجم / حجم) ، 1.4٪ 1-أوكتانول (حجم / حجم) ؛ العمود: عمودان 4.6 مم × 250 نانومتر ، 5 ميكرومتر ، متصلان في سلسلة ؛ درجة حرارة ترموستات متعدد الأعمدة: 25 درجة مئوية ؛ حجم الحقن: 100 ميكرولتر ؛ معدل التدفق: 1 مل / دقيقة ؛ وقت التشغيل: 40 دقيقة. استخدام الكشف عن امتصاص طيف الأشعة فوق البنفسجية. احتفظ بالخيار المحدد للحصول على طيف الأشعة فوق البنفسجية من 200 نانومتر إلى 400 نانومتر.
6. تحديد الذروة والتكامل
- حدد القمم باستخدام وقت الاستبقاء وأطياف الأشعة فوق البنفسجية لكل ريتينويد ذي أهمية كما لوحظ من تحليل معايير الريتينويد (الشكل 3 والجدول 3 والجدول 4).
- باستخدام نظام البيانات الكروماتوغرافية لنظام HPLC المختار ، قم بدمج القمم المحددة. يتناسب التكامل أو المساحة الموجودة أسفل المنحنى طرديا مع كمية المادة التحليلية. راجع المنحنى القياسي الخارجي الذي تم إنشاؤه في الخطوة 1 لتحديد كمية المادة التحليلية.
- لتحليل الكروماتوغرامات الناتجة عن الأنسجة البيولوجية ، استخدم التكامل اليدوي على التكامل التلقائي الذي توفره أنظمة البيانات الكروماتوغرافية النموذجية ، حيث غالبا ما يتم ملاحظة التغيرات في المعلمات مثل وقت الاحتفاظ في مثل هذه العينات.
- تأكد من أن الكروماتوغرامات لا تظهر مخالفات قد تشير إلى مشكلات أثناء التشغيل ، مثل خطوط الأساس الصاخبة أو القمم غير الغوسية. تشير هذه المشكلات إلى وجود ملوثات في HPLC أو تآكل الأعمدة ويجب تصحيحها لتحليلها بشكل صحيح.
النتائج
هنا ، استخدمنا الطريقة الموضحة أعلاه لاكتشاف وتحديد الرتينويدات في أنسجة العين والجهازية للفئران وإنشاء مخططات كروماتوغرامية تمثيلية. سنقدم أيضا ملخصا للرتينويدات النموذجية التي يمكن اكتشافها في هذه الأنسجة.
في عمر 6 أشهر ، تم القتل الرحيم للفئران من خلال اختناق ثاني أكسيد الكربون2 . للحفاظ على محتوى الريتينويد العيني ، تم تكييف الفئران مع الظلام لمدة يومين قبل القتل الرحيم والاستخراج. تم حصاد عينين و 0.2 غرام من الكبد و 75 ميكرولتر من الدم لاستخراج الريتينويد وتحليل HPLC اللاحق. بالنسبة لأنسجة العين ، تم استخراج عين واحدة دون إضافة هيدروكسيلامين ، بينما تعرضت الأخرى لعلاج الهيدروكسيلامين. بالنسبة للكبد والدم ، لم تكن هناك حاجة إلى علاج الهيدروكسيلامين لأن الريتينالديهايد لا يتم اكتشافه عادة في هذه الأنسجة.
في الكروماتوجرام لعين الفأر غير المعالجة بالهيدروكسيلامين ، تم تحديد 13-رابطة الدول المستقلة - شبكية العين ، أحد أيزومرات الريتينالديهايد غير المتعارف عليها. بالإضافة إلى ذلك ، تم تحديد كل من 11-CIS-retinal و All-Trans-Retinal ، وهما أيزومرات الريتينالديهايد الكنسي. في كلا الكروماتوغرام ، تم تحديد كل من الدورة البصرية المتوسطة 11-cis-retinol ، بالإضافة إلى شكل النقل الرئيسي لفيتامين أ بالكامل عبر الريتينول (الشكل 4 أ).
في الكروماتوجرام لعين الفأر المعالجة بالهيدروكسيلامين ، كانت جميع أيزومرات الريتينالديهايد المذكورة سابقا لا تزال موجودة. ومع ذلك ، تم زيادة أوقات الاحتفاظ بهذه الأيزومرات بشكل كبير. علاوة على ذلك ، توجد أيزومرات الريتينالديهايد هذه الآن كأيزومرات متزامنة ومضادة. أثناء القياس الكمي من خلال تكامل الذروة ، يجب جمع كل من القمم المتزامنة والقمم المضادة للحصول على قيمة تكامل دقيقة. كان كل من 11-cis-retinol و all-trans-retinol لا يزالان موجودين (الشكل 4 ب).
في الكروماتوجرام للأنسجة الكبدية للفأر ، تم تحديد بالميتات الريتينيل والريتينول المتحول بالكامل داخل هذه الأنسجة. يعمل بالميتات الريتينيل ، وهو إستر الريتينيل ، كشكل تخزين رئيسي لفيتامين أ في الثدييات ويمكن العثور عليه بكميات كبيرة داخل أنسجة الكبد في الثدييات. يطلق الكبد فيتامين أ في الأنسجة الجهازية مثل holo-RBP4 ، الذي يحتوي على الريتينول المتحولة بالكامل داخل مركب RBP4-transthryetin. بعد ذلك ، يمكن تحديد ذروة كبيرة من الريتينول عبر جميع الأشكال داخل هذا الكروماتوجرام (الشكل 4 ج).
في الكروماتوجرام لدم الفئران ، تم تحديد ذروة كبيرة من الريتينول المتحول. بالنظر إلى أن holo-RBP4 من الكبد يتم إطلاقه إلى الأنسجة الجهازية من خلال الدورة الدموية ، فإن هذا كما هو متوقع (الشكل 4 د). يمكن أن يكون امتصاص طيف الأشعة فوق البنفسجية المميز (~ 250-400 نانومتر) للأشكال الإسوية للريتينويد على قمم HPLC التي تم حلها المعتمدة على الوقت مفيدا في التأكيد الأولي لجودة وجود الشكل الإسوي في ذروة معينة (الشكل 5).
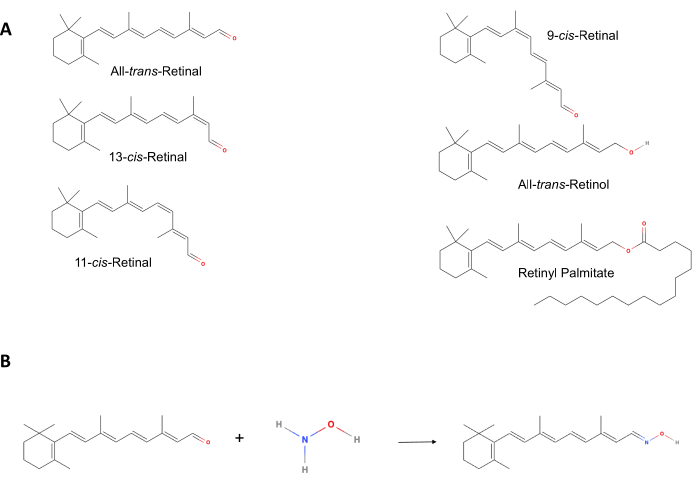
الشكل 1: الهياكل الكيميائية للريتينويدات. (أ) توجد هذه الرتينويدات عادة في أنسجة الفئران المستخرجة. لاحظ المجموعات النهائية القطبية المختلفة ، بالإضافة إلى المواقع المختلفة للروابط المزدوجة لرابطة الدول المستقلة في أيزومرات الريتينويد. (ب) يؤدي تحويل الريتينالديهايد إلى أكسمات الشبكية إلى زيادة كفاءة الاستخلاص ، ويمنع الشطف المشترك للقمم مع بالميتات الريتينيل ، وكذلك الشطف المشترك داخل أيزومرات الريتينالديهايد. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 2: سير العمل لحصاد الأنسجة ، والتجانس ، واستخراج الريتينويد وتحليله. تم تجانس واستخراج عينات الشبكية والأنسجة من الفئران المتكيفة مع الظلام. الخطوة 1: بعد القتل الرحيم للفئران وفقا للإرشادات ، يتم جمع الدم والأنسجة المختلفة. الخطوات 2-4: يتم تجانس الأنسجة بعد ذلك باستخدام محلول ملحي وميثانول ، باستخدام هيدروكسي أمين هيدروكلوريد للتحليلات الكمية. الخطوات 5-7: تتم معالجة الرتينويدات باستخدام الهكسان ، متبوعا بالتبخر. الخطوات 8,9: معلق ب 100 ميكرولتر من الهكسان للتأكد من إذابة جميع الريتينويدات. الخطوة 10: أخيرا ، يتم تحليل العينات باستخدام HPLC. اختصار: HPLC = كروماتوغرافيا سائلة عالية الأداء. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 3: مخطط الكروماتويات لمعايير الريتينويد ومعايير الريتينويد المعالجة بالهيدروكسيلامين. (أ) يحتوي هذا الكروماتوجرام على بالميتات الريتينيل ، و 13-رابطة الدول المستقلة - شبكية العين ، و 11-رابطة الدول المستقلة - شبكية العين ، و 11-رابطة الدول المستقلة - الريتينول ، و 13-رابطة الدول المستقلة - الريتينول ، وجميع معايير الريتينول. (ب) يحتوي هذا الكروماتوجرام على بالميتات الريتينيل ، و 13-رابطة الدول المستقلة - شبكية العين ، و 11-رابطة الدول المستقلة - شبكية العين ، و 11-رابطة الدول المستقلة - الريتينول ، و 13-رابطة الدول المستقلة - الريتينول ، وجميع معايير الريتينول المتحولة. يحتوي هذا الكروماتوجرام على أيزومرات الريتينالديهايد المضادة للأكسيم ، بالإضافة إلى أيزومرات الريتينول. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 4: الكروماتوغرام التمثيلي. (أ) الكروماتوجرام التمثيلي لأنسجة العين في الفئران. يحتوي هذا الكروماتوجرام على الرتينويدات الموجودة عادة في أنسجة العين الفئرانية ، بما في ذلك أيزومرات الريتينالديهايد ، بالإضافة إلى أيزومرات الريتينول. (ب) الكروماتوغرام التمثيلي لأنسجة العين الفأرية المعالجة بالهيدروكسيلامين. لاحظ أنه بدلا من الريتينالديهايد غير المعدلة كيميائيا الموجودة في الكروماتوغرامات السابقة (الشكل 4 أ) ، يحتوي هذا الكروماتوغرام على أيزومرات الريتينالديد المضادة للأكسيم ، بالإضافة إلى أيزومرات الريتينول. (ج) الكروماتوجرام التمثيلي لأنسجة كبد الفئران. يحتوي هذا الكروماتوجرام على الرتينويدات الموجودة عادة في الأنسجة الكبدية في الفئران ، بما في ذلك بالميتات الريتينيل والريتينول المتحول. (د) الكروماتوغرام التمثيلي لدم الفأر. يحتوي هذا الكروماتوجرام على الرتينويدات الموجودة عادة في دم الفئران ، بما في ذلك الريتينول المتحول. الرجاء النقر هنا لعرض نسخة أكبر من هذا الشكل.
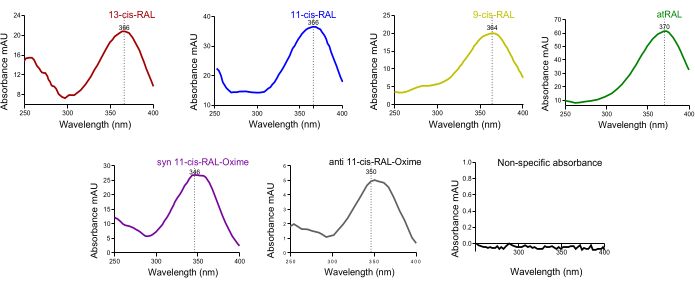
الشكل 5: طيف امتصاص الأشعة فوق البنفسجية لأيزومرات الريتينالديهايد من أنسجة العين الفئرانية. أطياف الامتصاص ل (أ) 13-رابطة الدول المستقلة الشبكية ، (ب) 11-رابطة الدول المستقلة - الشبكية ، (ج) 9-رابطة الدول المستقلة - الشبكية ، (د) جميع عبر الشبكية ، (ه) متزامن 11-رابطة الدول المستقلة - أوكسيم الشبكية ، (F) مضاد 11-رابطة الدول المستقلة - أكسجين الشبكية. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 6: نظرة عامة على وحدات HPLC ، وتدفق الطور المتنقل ، والأجهزة الأخرى. يبدأ تدفق الطور المتحرك من زجاجات المذيبات المحضرة ويتم ضخه بضغط عال بواسطة المضخة الثنائية في جهاز أخذ العينات الآلي ، حيث يتم دمج المادة التحليلية في تدفق المذيبات. تصل المرحلة المتنقلة والتحليل إلى حجرة العمود المنظمة لدرجة الحرارة ، وأخيرا ، إلى كاشف مصفوفة الصمام الثنائي للقياس. (أ) شاشة شاشة ملونة حمراء تقلل من الأيزومرة الضوئية للريتينويدات. (ب) مضخة ثنائية. (ج) جهاز أخذ عينات القارورة. (د) ترموستات متعدد الأعمدة. (ه) كاشف مصفوفة الصمام الثنائي. (و) مجمع الكسور التحليلي. (ز) حاوية نفايات بولي عالية الكثافة. (ح) من اليسار إلى اليمين ، غطاء تجعيد من الألومنيوم ، إدراج 250 ميكرولتر مع أقدام بوليمر ، قارورة علوية مجعد ملون بالعنبر ، التجميع النهائي لقارورة الحقن. (ط) جهاز طرد مركزي مبرد على اليسار. صحيح ، مكثف الطرد المركزي. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
| مركب | الامتصاصية المولية (ε) | المذيبات | مرجع |
| ريتينيل بالميتات | 49260 | ايثانول | هوبارد وآخرون 49 |
| 13-رابطة الدول المستقلة - الشبكية | 35500 | ايثانول | هوبارد وآخرون 49 |
| 11-رابطة الدول المستقلة - الشبكية | 24935 | ايثانول | هوبارد وآخرون 49 |
| 9-رابطة الدول المستقلة - الشبكية | 36100 | ايثانول | Robeson et al.51 |
| جميع الشبكية العابرة | 42880 | ايثانول | هوبارد وآخرون 49 |
| 11-رابطة الدول المستقلة - الريتينول | 34890 | ايثانول | هوبارد وآخرون 49 |
| 13-رابطة الدول المستقلة - الريتينول | 48305 | ايثانول | Robeson et al.50 و Robeson et al.51 |
| الريتينول المتعدد العبور | 52770 | ايثانول | هوبارد وآخرون 49 |
الجدول 1: الامتصاصية المولية للريتينويد في الإيثانول. تم جمع قيم الامتصاص المولية للريتينويدات من كين ونابولي44 ، هوبارد وآخرون 46 ، روبسون وآخرون 47 ، وروبيسون وآخرون 48. تعتمد الامتصاصية المولية على المذيب. القيم المدرجة هنا خاصة بالريتينويدات المذابة في الإيثانول.
| نسيج | كمية حصاد الأنسجة | حجم التجانس |
| دم | 75 ميكرولتر | غير متاح |
| كبد | 0.2 جرام | 2 مل |
| كلية | 2 الكلى الكاملة | 2 مل |
| جلد | 0.2 جرام | 1 مل - 1.5 مل |
| طحال | 1 طحال كامل | 1 مل |
| عين | كلا شبكية العين ، حمام السباحة 4 شبكية العين | 1 مل |
| دماغ | 1 الدماغ كله | 2 مل |
| قلب | 1 قلب كامل | 1 مل |
| رئة | 0.2 جرام | 2 مل |
الجدول 2: كمية الأنسجة الموصى بها لكل تحليل. كمية الأنسجة لكل تحليل وحجم 50٪ محلول ملحي مثلج (0.9٪) و 50٪ ميثانول لتجانس الأنسجة ، على النحو الموصى به من قبل كين ونابولي44.
| مركب | وقت الاستبقاء (دقيقة) | أقصى امتصاص الأشعة فوق البنفسجية (نانومتر) |
| ريتينيل بالميتات | 5.177 | 326 |
| 13-رابطة الدول المستقلة - الشبكية | 7.268 | 366 |
| 11-رابطة الدول المستقلة - الشبكية | 7.691 | 366 |
| 9-رابطة الدول المستقلة - الشبكية | 7.931 | 364 |
| جميع الشبكية العابرة | 8.993 | 370 |
| 11-رابطة الدول المستقلة - الريتينول | 17.003 | 318 |
| 13-رابطة الدول المستقلة - الريتينول | 17.83 | 328 |
| الريتينول المتعدد العبور | 23.933 | 326 |
الجدول 3: أوقات الاحتفاظ والأطوال الموجية القصوى للامتصاص للريتينويدات. لوحظت هذه القيم عند استخدامها مع الطريقة الموصوفة والمرحلة المتنقلة ، كما تم اكتشافها باستخدام كاشف مصفوفة الصمام الثنائي المشار إليه.
| مركب | وقت الاستبقاء (دقيقة) | أقصى امتصاص الأشعة فوق البنفسجية (نانومتر) |
| Syn 11-رابطة الدول المستقلة تأكسج الشبكية | 9.59 | 346 |
| سين جميع التأكسج عبر الشبكية | 10.6 | 356 |
| Syn 13-رابطة الدول المستقلة تأكسج الشبكية | 11.3 | 352 |
| مكافحة 13-رابطة الدول المستقلة تأكسج الشبكية | 13 | 356 |
| مكافحة 11-رابطة الدول المستقلة تأكسج الشبكية | 15.1 | 350 |
| مضاد جميع التأكسج عبر الشبكية | 19.7 | 360 |
الجدول 4: أوقات الاحتفاظ والأطوال الموجية القصوى للامتصاص للريتينالديهايدات المعالجة بالهيدروكسيلامين ، مما ينتج عنه أيزومرات متزامنة ومضادة للأكسيم لكل ريتينالديهايد. لوحظت هذه القيم عند استخدامها مع الطريقة الموصوفة والمرحلة المتنقلة ، كما تم اكتشافها باستخدام كاشف مصفوفة الصمام الثنائي المشار إليه.
المناقشة
في هذه الطريقة ، يتم استخدام HPLC في المرحلة العادية لاكتشاف وتحديد كمية الريتينويدات ذات الصلة ، بما في ذلك استرات الريتينيل والريتينالديهايد والريتينول. نظرا لأهمية 11-cis-retinal باعتباره الصبغة الحرجة في تنشيط رودوبسين GPCR ، فإن الطريقة التي يمكنها اكتشاف المستقلبات المرتبطة بإنتاج 11-CIS-Retinal أمر بالغ الأهمية لدراسة الوظيفة البصرية الشاملة. الميزة الرئيسية لهذه الطريقة هي أنه يمكن اكتشاف جميع الأيزومرات ذات الصلة لكل من الريتينالديهايد والريتينول وقياسها كميا في وقت واحد بتشغيل واحد. نظرا لندرة الأنسجة التجريبية القابلة للحياة ، تسمح هذه الطريقة بالاستخدام الفعال للأنسجة في الكشف عن الريتينويد. في حين تم الإبلاغ عن استخدام المراحل المتنقلة القائمة على الهكسان وخلات الإيثيل في فصل الريتينويدات49 ، فإن إضافة 1،4-ديوكسان و 1-أوكتانول يحسن دقة أيزومرات الريتينويد. 1،4-ديوكسان ضروري لدقة 13-CIS-retinol و 11-CIS-retinol50 ، في حين أن الكحوليات طويلة السلسلة مثل 1-أوكتانول تعمل على تحسين فصل أيزومرات الريتينول45،51،52.
لتقدير كمية أيزومرات الريتينالديهايد ، يلزم التحويل المسبق إلى أكسسام الريتينالديهايد المقابل مع الهيدروكسيلامين ، لأن مجموعة الألدهيد التفاعلية عرضة للتفاعل مع الجزيئات الحيوية الأخرى مثل البروتينات والدهون45،53،54. يتم استخراج أوكسيم الريتينالديهايد بسهولة أكبر وتتسبب في تقويض قمم الريتينالديهايد في وقت لاحق من التشغيل ، وبالتالي منع ذروة الشطف المشترك مع مجموعة غير معروفة من القمم وذروة بالميتات الريتينيل التي تتلاشى عند ~ 5-8 دقائق للأنسجة البيولوجية. يمنع علاج الريتينالديهايد بالهيدروكسيلامين أيضا الشطف المشترك للريتينالديهايد مع أوقات شطف مماثلة45. يولد التحويل إلى أكسسام الريتينالديهايد كلا من الأيزومرات المتزامنة والمضادة ، والتي تتسرب في وقتين مختلفين مع قمتين مختلفتين لكل أيزومر ريتينالديهايد. يجب جمع التكامل لكلتا القمتين لتحديد كل أيزومر ريتينالديهايد بشكل صحيح. إلى جانب وقت الاستبقاء ، توفر أطياف الأشعة فوق البنفسجية مقياسا آخر يمكن استخدامه في تحديد الذروة. يظهر كل ريتينويد أقصى امتصاص للأشعة فوق البنفسجية مختلفا قليلا. عند أخذها في الاعتبار جنبا إلى جنب مع وقت الاحتفاظ ، يسمح هذان المقياسان بتحديد القمم بدقة (الجدول 3 والجدول 4).
في حين أن وجود أيزومرات الريتينالديهايد الكنسية مثل 11-رابطة الدول المستقلة والشبكية بالكامل عبر الشبكية من المتوقع في أنسجة العين ، مع كون 11-CIS-retinal هو كروموفور ترابط رودوبسين الحرج وكل الشبكية العابرة هي الترابط الضوئي ، يتم الكشف عن أيزومرات الريتينالديهايد الأخرى غير الكنسية بهذه الطريقة. على وجه الخصوص ، تم اكتشاف 13-CIS-retinal بسهولة في عمليات HPLC لأنسجة العين الفئرانية أثناء تحليلنا (الشكل 4A-D). إن ظهور هذه الريتينالديهايدات غير الكنسية ليس غير متوقع تماما ، ومع ذلك ، فإن كلا من 13-cis-retinal و 9-cis-retinal هي منتجات ثانوية معروفة ناتجة عن الإجهاد الناجم عن الضوء على شبكيةالعين 55،56. لا تشارك أيزومرات الريتينالديهايد هذه في مسار سلسلة التنبيغ الضوئي المتعارف عليه وتظل مصائرها الأيضية غير معروفة نسبيا. ومع ذلك ، فقد ثبت أن 9-cis-retinal يرتبط أيضا بثبات بجيب ربط رودوبسين ، مما يشكل إيزورودوبسين. لم يتم بعد توصيف دور إيزورودوبسين بشكل كامل ، لكن الدراسات أظهرت أن الأيزورودوبسين يظهر قدرات حساسة للضوء تشبه إلى حد كبير رودوبسين 11-رابطة الدول المستقلة القائم على الشبكية57،58. على الأقل ، توفر قدرة 9-cis-retinal على تكوين الأيزورودوبسين بثبات والأيزومير الضوئي في جميع الشبكية العابرة تفسيرا معقولا لغيابه في تحليل HPLC56. من ناحية أخرى ، لم يثبت أن 13-رابطة الدول المستقلة شبكية العين تشارك في أي مسار كيميائي حيوي معروف للعين ، وقد يؤدي تراكمه داخل أنسجة العين إلى إجهاد تأكسدي داخل شبكيةالعين 55،59،60.
على الرغم من أن 9-cis-retinal لا يوجد عادة في أنسجة الفئران ، إلا أنه تجدر الإشارة إلى أن الطريقة المعالجة بالهيدروكسيلامين ليست طريقة قابلة للتطبيق لفصل وقياس 9-CIS-Retinal. ستصل قمم الشبكية المتزامنة 9-رابطة الدول المستقلة و syn 13-cis-retinal عند 11.2 دقيقة. في الحالات التي يتوقع فيها وجود كميات كبيرة من 9-cis-retinal ، كما هو الحال عند تطبيقه خارجيا ، سيكون من الممكن فقط القياس الكمي للشبكية 9-cis-retinal و 13-cis-retinal مجتمعة. لتحديد نوعي ، فإن تنفيذ الطريقة دون معالجة الأنسجة بالهيدروكسيلامين مع السماح بالفصل الكامل لقمم الشبكية 13-رابطة الدول المستقلة و 9-رابطة الدول المستقلة لشبكية العين.
إلى جانب أنسجة العين ، يمكن أيضا تطبيق هذه الطريقة بسهولة على الأنسجة الجهازية. في حين أن الريتينالديهايد في أشكالها الأيزوميرية المختلفة لا توجد عادة في الأنسجة الجهازية ، فإن جميع الريتينول المعبر المرتبط بالبروتين 4 المرتبط بالريتينول (holo-RBP4) هو شكل النقل الرئيسي لفيتامين أ في الكائنات الحية للثدييات ويمكن اكتشاف الريتينول المتحول بسهولة في الدم باستخدام هذه الطريقة. إلى جانب الدم ، يمكن أيضا اكتشاف الريتينول المتحول بالكامل في جميع الأنسجة الجهازية. ومن ثم ، باستخدام هذه الطريقة ، يمكن إنشاء ملف تعريف شبكي جهازي كامل على مستوى الأنسجة باستخدام هذه الطريقة.
نظرا لأن الريتينالديهايد ، وخاصة رابطة الرودوبسين الحرجة 11-رابطة الدول المستقلة - شبكية العين ، معرضة بشدة للأيزومرة الضوئية ، فمن الأهمية بمكان اتخاذ تدابير وقائية لمنع التعرض العرضي للضوء أثناء أي من الخطوات الموضحة أعلاه. إلى جانب المصادر الواضحة من إضاءة الغرفة ولوحات العدادات ، وجدنا أن الضوء الضال من مصابيح LED الملحقة في أدوات مختلفة ، مثل تلك الموجودة خلف الأدوات ، بما في ذلك HPLC نفسها ، هي مصادر رئيسية للتعرض العرضي للضوء (الشكل 6). بالإضافة إلى ذلك ، وجدنا أن الغرفة المظلمة المخصصة كانت حيوية للتعامل السليم مع أيزومرات الريتينالديهايد والأنسجة التجريبية. إلى جانب تقليل الضوء ، نوصي بمعالجة الأنسجة بسرعة وسرعة بعد القتل الرحيم والحصاد لأن تحلل أيزومرات الريتينالديهايد يحدث حتى في حالة عدم وجود ضوء. من الناحية المثالية ، يجب إكمال حصاد الأنسجة واستخراجها وتحليل HPLC في نفس اليوم.
يجب تخزين الأنسجة التي لا تتم معالجتها على الفور في الظلام عند -80 درجة مئوية ويجب عدم تخزينها لأكثر من أسبوع قبل المعالجة. كما ذكرنا أعلاه ، فإن جميع المذيبات المستخدمة في المرحلة المتنقلة وفي خطوات الاستخراج في الطريقة المذكورة أعلاه شديدة السمية ومتقلبة وقابلة للاشتعال. يجب استخدام الإجراءات والمعدات المناسبة عند التعامل مع هذه المذيبات الخطرة. يجب ارتداء معدات الحماية الشخصية المناسبة (PPE) مثل قفازات البوتيل وأجهزة التنفس المعتمدة من NIOSH وحماية العين قبل التعامل مع المذيبات ، ويجب أن تتم جميع عمليات نقل المذيبات داخل غطاء الدخان. اعلم أن 1،4-ديوكسان عرضة لتكوين بيروكسيد متفجر عند التعرض للأكسجين واحتفظ بجميع حاويات المذيبات التي تحتوي على 1،4-ديوكسان مغلقة بإحكام من الهواء.
إذا كانت طريقة HPLC في المرحلة العادية غير قابلة للتطبيق بسبب عدم كفاية المواد أو المعدات ، فإن طرق الطور العكسي الأكثر شيوعا مع مذيبات أقل تقلبا مثل الأسيتونيتريل والماء موجودة لاكتشاف وتحديد كمية الريتينالديهايد والريتينول. ومع ذلك ، فإن هذه الطرق غير قادرة على فصل الأيزومرات وهي قادرة فقط على اكتشاف إجمالي الريتينالديهايد أو إجمالي الريتينول44،54.
الإفصاحات
ويعلن أصحاب البلاغ عدم وجود تضارب في المصالح.
شكر وتقدير
تم دعم هذا العمل من خلال منح NIH-NEI (EY030889 و 3R01EY030889-03S1) وجزئيا من خلال صناديق بدء تشغيل جامعة مينيسوتا إلى GPL. نود أيضا أن نشكر المعهد الوطني للعيون على تزويدنا بمعيار 11-cis-retinal المستخدم في هذه المخطوطة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| <قوي > كاشف < / قوي > | |||
| 1-أوكتانول ، مناسب ل HPLC ، & ge ؛ 99.5٪ | سيجما ألدريتش ، ميليبور سيجما | 203-917-6 | |
| 1،4-ديوكسان ، مناسبة ل HPLC ، & ge ؛ 99.5٪ | سيجما ألدريتش ، ميليبور سيجما | 204-661-8 | |
| 11-رابطة الدول المستقلة المعهد | الوطني للعيون | N / A | |
| 11-CIS-Retinol | تورونتو للكيماويات البحثية | TRC-R252105 | |
| 13-رابطة الدول المستقلة | تورونتو للكيماويات البحثية | TRC-R239900 | |
| 13-CIS-retinol | تورونتو للكيماويات البحثية | TRC-R252110 | |
| جميع الشبكية | تورونتو للكيماويات البحثية | TRC-R240000 | |
| جميع الريتينول | تورونتو للكيماويات البحثية | TRC-R252002 | |
| أسيتات الإيثيل ، مناسبة ل HPLC ، & ge ؛ 99.7٪ | سيجما ألدريتش ، ميليبور سيجما | 205-500-4 | |
| هكسان ، HPLC الصف | فيشر العلمي ، الطيف الكيميائي | 18-610-808 | |
| الميثانول (HPLC) | فيشر العلوم | A452SK-4 | |
| ريتينيل بالميتات | تورونتو للكيماويات البحثية | TRC-R275450 | |
| كلوريد الصوديوم (بلوري / معتمد ACS) | فيشر ساینستيفيك | S271-500 | |
| Instruments< / strong> | |||
| 1260 Infinity II جامع الكسور التحليلي | Agilent | G1364F | |
| 1260 Infinity II مضخة ثنائية | Agilent | G7112B | |
| 1260 Infinity II كاشف مصفوفة الصمام الثنائي | Agilent | G7115A | |
| 1260 Infinity II ترموستات متعدد الأعمدة | Agilent | G7116A | |
| 1260 Infinity II Vialsampler | Agilent | G7129A | |
| ST40R جهاز طرد مركزي مبرد | حراري علمي | TSST40R | |
| Vacufuge Plus مكثف الطرد المركزي | Eppendorf | 22820168 < | |
| قوي > مستهلكات < / قوي> | |||
| مل قارورة برغي كهرماني علوية | Agilent | 5188-6535 | |
| غطاء تجعيد مع PTFE / حاجز مطاطي أحمر ، 11 مم | Agilent | 5183-4498 | |
| الطرد المركزي الزجاجية المخروطية القابل للتصرف | Millipore Sigma | CLS9950215 | |
| أنبوب غطاء المسمار ، 15 مل | Sarstedt | 62.554.502 | |
| إدراج قارورة ، 150 وميكرو ؛ L ، زجاج بأقدام بوليمر | Agilent | 5183-2088 |
المراجع
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
إعادة الطباعة والأذونات
الوسوم
