يصف هذا البروتوكول استخدام نواقل الفيروس المرتبط بالغدة (AAV) لوضع العلامات الخاصة بالخلايا والتصوير في الجسم الحي باستخدام منظار العين بالليزر المسح الضوئي متحد البؤر (CSLO). تتيح هذه الطريقة التحقيق في أنواع خلايا الشبكية المختلفة ومساهماتها في وظيفة الشبكية ومرضها.
مقالة منهجية
التصوير الطولي في الجسم الحي لخلايا الشبكية باستخدام الأنماط المصلية للفيروسات المرتبطة بالغدة عبر تنظير العين بالليزر المسح الضوئي متحد البؤر
في هذه المقالة
ملخص
الملخص
تتطلب الطبيعة الديناميكية للعمليات الخلوية للشبكية تقدما في توصيل الجينات وتقنيات المراقبة الحية لتعزيز فهم أمراض العين وعلاجها. تقدم هذه الدراسة نهجا محسنا للفيروس المرتبط بالغدة (AAV) ، باستخدام أنماط مصلية ومحفزات محددة لتحقيق كفاءة تعداء مثالية في خلايا الشبكية المستهدفة ، بما في ذلك الخلايا العقدية الشبكية (RGCs) والخلايا الدبقية مولر. من خلال الاستفادة من دقة تنظير العين بالليزر المسح الضوئي متحد البؤر (CSLO) ، يقدم هذا العمل طريقة غير جراحية للتصوير في الجسم الحي يلتقط التعبير الطولي لبروتين الفلورسنت الأخضر بوساطة AAV (GFP). يلغي هذا النهج الحاجة إلى الإجراءات النهائية ، ويحافظ على استمرارية الملاحظة ورفاهية الموضوع. علاوة على ذلك ، يمكن تتبع إشارة GFP في RGCs المصابة ب AAV على طول المسار البصري إلى القولون العلوي (SC) والنواة الركبية الجانبية (LGN) ، مما يتيح إمكانية رسم خرائط المسار البصري المباشر. توفر هذه النتائج بروتوكولا مفصلا وتوضح تطبيق هذه الأداة القوية للدراسات في الوقت الفعلي لسلوك خلايا الشبكية ، والتسبب في المرض ، وفعالية تدخلات العلاج الجيني ، مما يوفر رؤى قيمة حول شبكية العين الحية وروابطها.
المقدمة
كونها الجزء الوحيد الذي يمكن الوصول إليه بصريا من الجهاز العصبي المركزي ، تعمل شبكية العين كنموذج قيم لأبحاث علم الأعصاب1. تلعب الخلايا العقدية الشبكية (RGCs) ، الخلايا العصبية الناتجة في شبكية العين التي تنقل المعلومات المرئية إلى الدماغ ، دورا مهما في الوظيفة البصرية. يؤدي فقدانها أو اختلالها الوظيفي إلى ضعف البصر والعمى الذي لا رجعة فيه ، كما هو موضح في الجلوكوما والاعتلالات العصبية البصريةالأخرى 2. تعتبر الخلايا الدبقية الرئيسية في الشبكية ، وهي الخلايا الدبقية الرئيسية في شبكية العين ، ضرورية للحفاظ على توازن الشبكية ، وتوفير الدعم الهيكلي والتمثيلي للخلايا العصبية ، وتنظيم مستويات الناقلات العصبية ، والمساهمة في إصلاح الشبكيةوتجديدها 3. يتورط الخلل الوظيفي لديهم في أمراض الشبكية المختلفة ، بما في ذلك اعتلال الشبكية السكري4 ، والتنكس البقعي المرتبطبالعمر 5 ، والمتلازمة الإقفاريةالعينية 6. تظهر RGCs و Müller glia تفاعلات وثيقة وترابط. توفر Müller glia دعما أساسيا ل RGCs ، بينما يمكن أن يؤثر نشاط RGC على وظيفة Müller glia3،7. تعد دراسة كل من RGCs و Müller Glia أمرا بالغ الأهمية لفهم وظيفة الشبكية وتطوير علاجات فعالة لأمراض الشبكية المتعددة.
تستخدم التقييمات الحالية في أبحاث الشبكية بشكل أساسي تقنيات مثل التصوير المقطعي للتماسك البصري (OCT) لقياس سمك طبقة الألياف العصبية في الشبكية أو مسارات حزم المحورالعصبي 8،9. في حين أن هذه الطرق لا تقدر بثمن للكشف عن فقدان RGC ، إلا أنها لا توفر عرضا تفصيليا لمورفولوجيا RGC والخلايا الدبقية بسبب الدقة المحدودة. وبالمثل ، على الرغم من أن التقنيات المتقدمة مثل تنظير البصريات التكيفية للمسح الضوئي بالليزر (AO-SLO) تمكن من التصوير على المستوى الخلوي ل RGCs والمستقبلات الضوئية والخلايا الدبقية في شبكية العين البشريةالحية 10 ، إلا أن تعقيدها التقني وإمكانية الوصول المحدودة يقتصر استخدامها في المقام الأول على إعدادات البحث المتخصصة. بالنظر إلى هذه القيود ، هناك حاجة مستمرة لتطوير طرق يسهل الوصول إليها وموثوقية للدراسة المتعمقة لمجموعات خلايا شبكية معينة في الجسم الحي.
وفقا لذلك ، يهدف هذا البروتوكول إلى تقديم نهج تصوير بديل مناسب للتطبيقات البحثية في خلايا الشبكية. فهو يجمع بين قوة وضع العلامات الخاصة بنوع الخلية بوساطة AAV والطبيعة غير الغازية لتصوير CSLO. الفيروسات المرتبطة بالغدة (AAVs) هي نواقل توصيل جينية متعددة الاستخدامات معروفة بمناعتها المنخفضة وقدرتها على نقل مجموعة واسعة من أنواع الخلايا ، بما في ذلك الخلايا المنقسمة وغير المنقسمة11. هذا يجعلها أدوات مثالية لاستهداف مجموعات خلايا معينة داخل بيئة الشبكية المعقدة. من خلال استخدام نواقل AAV مع الأنماط المصلية والمحفزات المختارة بعناية ، يمكن تحقيق التعبير الانتقائي لبروتينات الفلورسنت في أنواع متعددة من الخلايا ذات الأهمية ، مثل RGCs و Müller glia. على سبيل المثال ، تشتهر AAV2 بكفاءتها العالية في التحويل في RGCs12،13 ، بينما AAV8 فعالة بشكل ملحوظ في استهداف المستقبلات الضوئية14 ، ويظهر AAV9 قدرات تعداء قوية في Müller glia15 ، مما يظهر كفاءة واسعة عبر طبقات خلايا الشبكية المختلفة. من المهم ملاحظة أن فعالية AAV لا تعتمد فقط على اختيار النمط المصلي ولكن أيضا على المحفزات ، التي تملي شدة وخصوصية الخلية للتعبير الجيني المعدل ، مما يؤكد أهمية الاختيار الدقيق لتحقيق التنبيغ الأمثل.
بالنسبة لوضع العلامات على RGC ، يستخدم هذا البروتوكول AAV2 مع مروج synapsin البشري (hSyn). يظهر AAV2 نقلا فعالا ل RGCs بعد الحقن داخل الجسم الزجاجي13 ، ومحفز hSyn ، وهو محفز عصبي في كل مكان ، يقود تعبيرا قويا ومحددا للجينات المعدلة داخل هذه الخلايا16. بالنسبة إلى Müller glia ، يستخدم البروتوكول نواقل AAV9 مدفوعة بمحفز GfaABC1D17 ، والذي يوضح تعبيرا قويا عن الجينات المعدلة وراثيا في هذه الخلايا15. يمكن نهج وضع العلامات المستهدف هذا الباحثين من تمييز هذه الخلايا عن أنسجة الشبكية المحيطة وتتبعها بمرور الوقت ، مما يوفر أساسا للمراقبة في الجسم الحي لخلايا الشبكية واستجاباتها للتغيرات البيئية البيئية.
تنظير العين بالليزر المسح الضوئي متحد البؤر (CSLO) هو تقنية تصوير غير جراحية توفر صورا عالية الدقة لشبكية العين الحية ، مما يتيح التصور في الوقت الفعلي لمجموعات خلايا الشبكية المصنفة بالفلورسنت18،19،20. يقوم شعاع الليزر المركز بمسح شبكية العين ، ويلتقط الضوء المنبعث الذي يمر عبر ثقب للتخلص من الإشارات خارج التركيز ، مما ينتج عنه صور أكثر وضوحا مع تباين محسن. يستخدم هذا البروتوكول نظام Heidelberg Spectralis CSLO ، والذي تم استخدامه على نطاق واسع لتصوير خلايا الشبكية في الحية ، بما في ذلك الدراسات التي تصور RGCs21،22والخلايا الدبقيةالصغيرة 23 ذات العلامات المعدلة وراثيا. من خلال استخدام وحدة HRA CSLO مع ليزر 488 نانومتر والمرشحات المناسبة ، يمكن للباحثين تصوير RGCs المصنفة بالفلورسنت أو Müller glia في الحية بعد الحقن داخل الجسم الزجاجي لنواقل AAV التي تحمل جينات مراسل الفلورسنت. يتتبع بروتوكول التصوير الطولي ، مع الجلسات الأسبوعية التي تغطي كلا من شبكية العين المركزية والمحيطية ، التغييرات بمرور الوقت. لإعطاء الأولوية لرعاية ، يستخدم البروتوكول نظام تتبع العين التلقائي (ART) لوحدة HRA CSLO ، مما يتيح الحصول على صورة دقيقة دون الحاجة إلى التخدير العام أو العدسات اللاصقة.
يسخر هذا البروتوكول القوة المشتركة ل AAV و CSLO لتمكين المراقبة الطولية لأنواع معينة من خلايا الشبكية في الجسم الحي. من خلال إقران خصوصية نوع الخلية لوضع العلامات بوساطة AAV مع قدرات التصوير غير الغازية عالية الدقة ل CSLO ، تسمح هذه الطريقة للباحثين بدراسة التغييرات الديناميكية في RGCs و Müller glia استجابة للمنبهات أو التدخلات المختلفة. تحمل هذه الأفكار إمكانات كبيرة لإبلاغ تطوير استراتيجيات تشخيصية وعلاجية جديدة لأمراض الشبكية.
البروتوكول
أجريت جميع التجارب وفقا لبيان ARVO لاستخدام في أبحاث طب العيون والرؤية وتمت الموافقة عليها من قبل اللجنة المؤسسية لرعاية واستخدامه في جامعة العاصمة الطبية ، بكين. تم استخدام ذكور الفئران C57BL / 6J البالغة من العمر أربعة أسابيع (يتراوح وزنها بين 15-20 جم) في جميع التجارب وتم إيواؤها في غرف يتم التحكم في درجة حرارتها مع دورة إضاءة / مظلمة 12/12 ساعة. كان طعام القوارض القياسي والماء متاحين بشكل رسمي. تفاصيل الكواشف والمعدات المستخدمة في هذه الدراسة مدرجة في جدول المواد.
1. تعداء خلايا الشبكية بوساطة AAV
ملاحظة: بالنسبة للتحويل المستهدف ل RGCs ، يستخدم هذا البروتوكول AAV2-hSyn-eGFP ، الذي يشتمل على محفز hSyn لدفع التعبير القوي عن GFP المحسن. يتم استهداف Müller glia باستخدام AAV9-GfaABC1D-eGFP. لتحقيق كفاءة النقل المثلى والتعبير القوي للجينات المعدلة وراثيا ، يوصى باستخدام حد أدنى من عيار AAV يبلغ 1 × 10¹² جينوم فيروسي (vg) / مل للحقن داخل الجسم الزجاجي في الفئران13.
- الالتزام ببروتوكولات السلامة الصارمة عند إجراء إجراءات تعداء خلايا الشبكية بوساطة AAV لمنع التعرض العرضي وضمان بيئة عمل آمنة.
- تنفيذ جميع الإجراءات التي تنطوي على نواقل فيروسية داخل خزانة معتمدة للسلامة الحيوية (BSC). تجهيز الموظفين بمعدات الحماية الشخصية المناسبة (PPE) ، بما في ذلك معاطف المختبر والقفازات وحماية العين ، طوال مدة الإجراء.
- التخلص من جميع المواد الحادة والمواد الخطرة البيولوجية بشكل صحيح وفقا لبروتوكولات السلامة المؤسسية للحفاظ على الامتثال وحماية جميع موظفي المختبر.
2. تحضير النواقل الفيروسية
- احصل على متجهات AAV2-hSyn-eGFP أو AAV9-GfaABC1D-eGFP المخزنة عند -80 درجة مئوية. قم بإذابة النواقل على الجليد مباشرة قبل الاستخدام للحفاظ على سلامة الفيروس.
- تخدير الفئران بحقن داخل الصفاق من الصوديوم البنتوباربيتال بجرعة 50 مجم / كجم. تأكد من عمق التخدير عن طريق اختبار ردود الفعل الخلفية للقدم قبل اتخاذ مزيد من الإجراءات.
- قم بقص الشعيرات لمنع التداخل مع المنطقة الجراحية أثناء العملية. قم بتطهير المدار بمحلول بوفيدون اليود بنسبة 20٪ لمدة 2 ثانية ، ثم اشطفه جيدا بمحلول ملحي عادي معقم.
- ضع قطرة 0.5٪ بروباراكايين موضعيا لتقليل الانزعاج ومنع حركات العين اللاإرادية.
3. مناولة النواقل الفيروسية والحقن داخل الجسم الزجاجي
- انقل 1 ميكرولتر من محلول AAV المحدد (إما AAV2-hSyn-eGFP أو AAV9-GfaABC1D-eGFP) إلى قطعة من فيلم البارافين النظيف المبرد مسبقا لتجنب تقلبات درجات الحرارة التي قد تؤثر على النشاط الفيروسي.
- استنشق محلول AAV باستخدام حقنة زجاجية من هاميلتون بإبرة مشطوفة 33 جم تحت المجهر الجراحي للعيون.
- ضع الفأر في الاستلقاء البطني تحت المجهر. قم بإمالة الرأس قليلا لرفع جانب العين المخصص للحقن. اضبط وحسن تكبير المجهر لتحديد المنطقة العلوية لمدار الماوس بوضوح.
- أدخل الإبرة 1-2 مم خلف الأطراف عند الهامش الصلبي العلوي للعين في التجويف الزجاجي. قم بحقن محاليل AAV ببطء لتجنب التدفق العكسي أو الضرر الناجم عن الضغط.
ملاحظة: موقع موقع الحقن: قم بإجراء الحقن في الربع الصدغي العلوي للعين ، حوالي 1 مم خلف الطرف. اختر هذا الموقع لتجنب الأوعية الدموية الرئيسية وتقليل مخاطر تلف العدسة. تجنب مواقع الحقن القريبة جدا من الأطراف لمنع تغلغل القزحية أو تآكل العدسة. تجنب الأوعية الدموية: استخدم مجهر التشغيل لفحص موقع الحقن المخطط له بعناية بحثا عن الأوعية الدموية المرئية قبل الحقن. في حالة وجود السفن ، اضبط نقطة الدخول قليلا لتجنبها. أدخل الإبرة بزاوية ضحلة ، موازية للقزحية ، لتقليل خطر تلف الأوعية الدموية. تجنب الحقن المتكرر في نفس المنطقة لتقليل خطر النزيف تحت الشبكية. - احتفظ بالإبرة في مكانها لمدة 30 ثانية للسماح للنواقل بالتشتت داخل الغرفة الزجاجية والاستقرار على سطح الشبكية ، وبالتالي زيادة فرص التحويل الناجح.
- اسحب الإبرة ببطء لتقليل مخاطر التدفق العكسي الزجاجي.
- ضع مرهما مضادا حيويا موضعيا على موقع الحقن مباشرة بعد الحقن. تأكد من وضع المرهم بشكل موحد لتغطية سطح العين بالكامل ، مما يمنع عدوى العين والالتهابات.
ملاحظة: يحتوي مرهم المضاد الحيوي على 1 مجم / جم ديكساميثازون ، و 3500 وحدة دولية / غرام من كبريتات النيومايسين ، و 6000 وحدة دولية / غرام من كبريتات البوليميكسين ب. - ضع الماوس على وسادة تدفئة للحفاظ على درجة حرارة الجسم أثناء التعافي من التخدير ، وراقبها عن كثب بحثا عن أي علامات للضيق أو التشوهات. بمجرد التعافي التام وعدم ظهور أي مضاعفات ، أعيدهم إلى أقفاصهم مع إمكانية الوصول إلى الطعام والماء العاديين.
4. التصوير في الجسم الحي باستخدام CSLO
- تحضير
- حدد الفأر المصاب ب AAV2-hSyn-eGFP أو AAV9-GfaABC1D-eGFP بعد 4 أسابيع من الحقن داخل الجسم الزجاجي. ضع قطرة واحدة من محلول العين الذي يحتوي على 0.5٪ تروبيكاميد و 0.5٪ فينيليفرين على سطح العين لتوسيع حدقة العين إلى حوالي 2 مم في القطر22.
ملاحظة: يوصى بفترة زمنية لا تقل عن 4 أسابيع من الفاصل الزمني لنقل AAV لوضع العلامات الفلورية المثلى لخلايا الشبكية بعد الحقن داخل الجسم الزجاجي13. بالإضافة إلى ذلك ، في تجارب سحق العصب البصري (ONC) ، تم تصوير شبكية العين في 4 أسابيع بعد الإصابة ، وكذلك في اليومين 7 و 14 بعد إصابة السحق. تم اختيار هذه النقاط الزمنية لالتقاط كل من تعبير AAV الأولي وتطور تغيرات الشبكية بعد ONC. - قم بتغطية منصة التصوير بقطعة من الوسادة النظيفة لتجنب التلوث المحتمل لبراز أثناء عملية التشغيل.
ملاحظة: توفر منصة التصوير المصممة خصيصا مساحة واسعة للحيوان للاستلقاء ، مما يضمن الاستقرار ويقلل من الحركة أثناء ضبط النفس اليدوي للحصول على الصورة بشكل مثالي. - انقل الماوس بعناية إلى منصة التصوير واترك فترة تأقلم تتراوح من 2 إلى 5 دقائق قبل التصوير لتقليل الإجهاد وتسهيل التكيف مع بيئة التصوير.
- بمساعدة فني ثان ، قم بتقييد برفق مع الحفاظ على حالة واعية طوال العملية. وفر فاصلا زمنيا للراحة 10 ثوان بعد 15 ثانية من التصوير للسماح بومض العين والحفاظ على رطوبة القرنية.
ملاحظة: افرك جلد فروة الرأس برفق للحث على شد الجفن تلقائيا ، وتجنب استخدام تقييد الجفن القسري أو الأجهزة الإضافية مثل المشابك ، وبالتالي تقليل خطر إصابة العين. لا يتم استخدام التخدير العام للحفاظ على الوضوح البصري أثناء جلسات التصوير الممتدة ، حيث يمكن أن يؤدي إلى تفاقم عتامة العدسة العابرة. وازن بين الحصول على صور عالية الجودة وراحة وسلامته طوال العملية. أكمل الإجراء بأكمله في غضون 5 دقائق لضمان رفاهية والحفاظ على جودة التصوير. - اضبط وضعية الرأس وقم بمحاذاة عدسة الكاميرا عن طريق ضبط مقبض التركيز البؤري (الشكل 1 ب) ومعالج الدقيق (الشكل 1 ج) لتوجيه منطقة الاهتمام (ROI) للتصوير اللاحق في الجسم الحي .
- حدد الفأر المصاب ب AAV2-hSyn-eGFP أو AAV9-GfaABC1D-eGFP بعد 4 أسابيع من الحقن داخل الجسم الزجاجي. ضع قطرة واحدة من محلول العين الذي يحتوي على 0.5٪ تروبيكاميد و 0.5٪ فينيليفرين على سطح العين لتوسيع حدقة العين إلى حوالي 2 مم في القطر22.
- تكوين النظام
- قم بتوصيل عدسة بزاوية عريضة 55 درجة غير ملامسة بالكاميرا لتوسيع مجال رؤية منطقة قاع العين.
- اضبط عجلة المرشح على الموضع A (تصوير الأوعية) لتمكين الحصول على وضع التصوير بالأشعة تحت الحمراء (IR) وتصوير الأوعية الفلورية (FA) (الشكل 1 أ). قم بتشغيل الليزر ومصدر الطاقة لتنشيط نظام التصوير CSLO.
- افتح برنامج Heidelberg Eye Explorer وقم بإنشاء فحص جديد بالنقر فوق أيقونة المريض الجديد في الجزء العلوي من شريط القائمة. أدخل معلومات ذات الصلة واقبل انحناء القرنية الافتراضي البالغ 7.7 مم في النافذة المنبثقة.
- حدد زر البدء الأصفر (الشكل 1E) على شاشة لوحة التحكم لبدء وضع التصوير المباشر.
- تصوير CSLO في الجسم الحي
- حدد وضع الأشعة تحت الحمراء (الشكل 1G) مع التألق الذاتي عند الطول الموجي للإثارة 820 نانومتر على لوحة التحكم. لتحقيق تصوير عالي الدقة ، فإن High Res. يتم تنشيط وضع (HR) إما من خلال واجهة النافذة أو لوحة التحكم اليدوية (الشكل 1F).
ملاحظة: عادة ما يكون التصوير الانعكاس بالأشعة تحت الحمراء (IR) هو الخطوة الأولى في تصوير العيون CLSO ، الذي تم الحصول عليه قبل تصوير الأوعية بالفلورسين (FA) ، لتوفير عرض أساسي. حتى الإضاءة ، والحد الأدنى من القطع الأثرية ، والتركيز الحاد على أوعية الشبكية الرئيسية ضرورية لموثوقية التركيز على المستوى z وتحقيق صور الأشعة تحت الحمراء عالية الجودة. - حرك العدسة باتجاه عين الماوس باستخدام عصا التحكم المزودة بأداة التحكم الدقيقة XYZ للضبط الدقيق. افحص الشفافية البصرية وأدر مقبض الحساسية (الشكل 1D) عكس اتجاه عقارب الساعة لتقليل سطوع صورة قاع العين إلى 40٪ -60٪ ، وبالتالي تجنب التعرض المفرط لقاع العين وتعزيز تصور تفاصيل الشبكية.
- اضبط مقبض التركيز البؤري ومعالج الدقيق حتى يتم تحديد القرص البصري وأوعية الشبكية بشكل لا لبس فيه على قاع العين.
ملاحظة: معايير المستوى البؤري الأمثل: (1) عرض قاع العين المضاء بشكل متساو بدون زوايا مظلمة. (2) إضاءة موحدة تحيط بالقرص البصري بدون بقع داكنة بؤرية أو تشويه. (3) شكل تجويف واضح للأوعية الشبكية الكبيرة مع الحركة المرئية لتدفق الدم. - قم بالتبديل إلى وضع FA (الشكل 1H) باستخدام ليزر أزرق صلب بطول موجي إثارة يبلغ 488 نانومتر ومرشح حاجز عند 500 نانومتر. أدر مقبض الحساسية (الشكل 1D) في اتجاه عقارب الساعة لزيادة سطوع صورة قاع العين إلى 50٪ -107٪ لإضاءة منطقة الشبكية المستهدفة.
- اضبط القيمة المتوسطة ART (شريط أزرق في الجزء السفلي الأيسر من واجهة البرنامج) على 15 على الأقل لتحسين نسبة الإشارة إلى الضوضاء. تحدد هذه الوظيفة متوسط سلسلة من عمليات المسح B التي تم الحصول عليها في نفس الموقع ، مما يحسن جودة الصورة.
ملاحظة: في حين أن قيمة متوسط ART الأعلى تعمل بشكل عام على تحسين جودة الصورة من خلال حساب المتوسط، إلا أنها تطيل أيضا مدة الفحص. يمكن أن تزيد هذه المدة الطويلة من خطر الإصابة بجفاف القرنية وإرهاق ، وهي عوامل يجب مراعاتها بعناية ، خاصة في تصوير المستيقظة. - أعد المحاذاة مع المستوى الداخلي لشبكية العين ، واستهداف GFP الذي يعبر عن RGCs أو خلايا Müller الدبقية. يتم إجراء تعديلات دقيقة لضمان إضاءة حادة لمجموعة الخلايا المطلوبة ، مثل RGC soma والمحاور ، أو جسم خلية مولر. حساسية التصوير متوازنة لتحقيق التصور الأمثل ومنع التشبع المفرط للخلايا الإيجابية ل GFP.
ملاحظة: للحصول على الصور ذات الوضوح والسطوع المماثلين لإشارة GFP ، يجب أن يكون اكتساب الحساسية ثابتا لجميع الفئران في التجربة. - اضغط لأسفل على مقبض الحساسية (الشكل 1D) لبدء وضع ART ، والذي يولد صورة متوسطة حية عبر الإنترنت. انتظر حتى يصل الشريط الأزرق (الذي يمثل قيمة متوسط ART) في الجزء السفلي الأيسر من واجهة البرنامج إلى قيمة ART المحددة (≥ 20 إطارا) وانقر فوق الزر Acquisition على واجهة التحكم لالتقاط صور قاع العين.
ملاحظة: بالنسبة لوضع ART ، تم دمج تتبع العين للتعويض تلقائيا عن حركات العين البسيطة أثناء التصوير في الجسم الحي ، مما يتيح التركيز البؤري المتسق على المستوى البؤري الشبكي المحدد. - بمجرد الحصول على الصور المطلوبة ، اخرج من وضع ART بالضغط على مقبض الحساسية على لوحة اللمس.
ملاحظة: لمنع جفاف القرنية والسماح بومض العين التلقائي ، تم تنفيذ فواصل لمدة 10 ثوان كل 15 ثانية أثناء عملية التصوير. - للتنقل في مناطق الشبكية الأنفية والصدغية ، حرك رأس الكاميرا أفقيا أثناء مراقبة الصورة الحية على الشاشة. بمجرد الوصول إلى المنطقة المستهدفة، قم بضبط التركيز البؤري وابدأ عملية التصوير كما هو موضح في الخطوات 2.3.1-2.3.8.
ملاحظة: حافظ على حركات الكاميرا البطيئة والمتحكم فيها مع ضمان إضاءة متسقة وساطعة لقاع العين. إذا ظهرت مناطق داكنة، فاستخدم المعالج الدقيق لضبط موضع الكاميرا عموديا وإعادة توسيط شبكية العين. - لتصوير شبكية العين العلوية، اضبط وضعية رأس الماوس برفق على وضع الوجه لأعلى. قم بإمالة رأس الكاميرا بشكل معتدل لأعلى لمحاذاة منطقة الشبكية العلوية. أعد ضبط التركيز حسب الحاجة وتابع التصوير.
- عند الانتهاء من التصوير ، تخرج جميع مناطق الشبكية المرغوبة من نافذة الاستحواذ ، ويتم حفظ الصور تلقائيا. ضع مادة التشحيم الموضعية على العين المصورة للحفاظ على ترطيب القرنية.
- لبدء فحص العين المقابلة ، أعد وضع على الجانب الآخر من المنصة وكرر الخطوات 2.3.1-2.3.11.
- حدد وضع الأشعة تحت الحمراء (الشكل 1G) مع التألق الذاتي عند الطول الموجي للإثارة 820 نانومتر على لوحة التحكم. لتحقيق تصوير عالي الدقة ، فإن High Res. يتم تنشيط وضع (HR) إما من خلال واجهة النافذة أو لوحة التحكم اليدوية (الشكل 1F).
5. معالجة الصور وتحليلها
- تصدير الصور وإعدادها
- افتح برنامج Heidelberg Eye Explorer وحدد جلسة تصوير CSLO المطلوبة بجودة جيدة. اختر صورا مفردة أو متتالية لنفس موقع الشبكية مع إعدادات حساسية متسقة بمرور الوقت.
- استبعاد الصور الباهتة ذات التركيز البؤري الضعيف أو وضوح القرنية، مع التأكد من استخدام الصور ذات التصور الواضح لهياكل الشبكية فقط للتحليل. قم بتصدير هذه الصور بتنسيق TIFF لمزيد من المعالجة.
- محاذاة الصورة واقتصاصها
- قم بتجميع الصور لكل عين فأر بناء على نفس منطقة الشبكية.
ملاحظة: يتم حفظ الصور الأصلية التي تم الحصول عليها من نظام CSLO بالتنسيق التالي: TIFF ، بأبعاد 1536 × 1536 بكسل ، ودقة 5.69 ميكرومتر / بكسل ، وقيمة ART تبلغ ≥15. - لإجراء فحوصات المتابعة ، قم باستيراد الصور إلى برنامج معالجة الصور المناسب. قم بتدوير الصور ومحاذاتها حسب الضرورة لمطابقة اتجاه الصورة الأساسية. عند حفظ الصور المعالجة أو تصديرها، استخدم الإعدادات التي تحافظ على أعلى جودة ممكنة للصورة لتقليل عناصر الضغط المحتملة.
- قم بمحاذاة صور CSLO من سلسلة زمنية لنفس العين عن طريق تدويرها لتتناسب مع الصورة الأساسية المعنية باستخدام الأوعية الدموية والقرص البصري كمعالم.
ملاحظة: افحص كل صورة محاذاة بعناية ، وقبل الشروع في الاقتصاص ، تأكد من أنها تفي بالمعايير التالية: (1) التقاط منطقة الشبكية الكاملة: يجب أن تشمل الصورة بالكامل منطقة الشبكية المقصودة ذات الاهتمام ، بما في ذلك المعالم الرئيسية مثل القرص البصري والأوعية الدموية الرئيسية. (2) عدم وجود قطع أثرية للحركة: يجب أن تكون الصورة خالية من عدم وضوح أو خطوط أو ازدواجية الهياكل الناتجة عن حركة العين أثناء التصوير ؛ (3) الحد الأدنى من التشويه: يجب أن تمثل الصورة بنية الشبكية بدقة دون الالتواء أو التمدد أو الضغط التي يمكن أن تنشأ من زوايا التصوير أو تأثيرات العدسة. (4) توازن مقاييس جودة الصورة: تقييمات مستويات ضوضاء الخلفية (الانحراف المعياري لشدة البكسل في المناطق الخالية من الهيكل < 5 (مقياس 0-255)) ؛ نسبة الإشارة إلى الضوضاء (SNR >20) ، واتساق الإضاءة (معامل التباين بين ستة أرباع للصور <10٪) وتوحيد الصورة (معامل التباين في المناطق المتجانسة <15٪). - حدد الصورة التي تم تدويرها وقم بتصديرها بتنسيق TIFF. لكل نقطة زمنية، استخدم أداة الاقتصاص لتحديد واقتصاص 5-10 مناطق عشوائيا (300 × 300 بكسل لكل منها) تحتوي على خلايا موجبة GFP من الصور المعتمدة من الجودة. قم بتصدير كل صورة تم اقتصاصها على حدة بتنسيق TIFF لمزيد من التحليل.
- قم بتجميع الصور لكل عين فأر بناء على نفس منطقة الشبكية.
- قياس شدة التألق
- افتح صور CSLO التي تم اقتصاصها (تدرج رمادي 8 بت ، 300 × 300 بكسل) في ImageJ / Fiji.
- لفحص التغييرات الإجمالية في إشارات الفلورسنت، قم بقياس إجمالي شدة التألق لكل صورة تم اقتصاصها باستخدام Analyze > Measure (أو Ctrl + M). سجل قيمة "المتوسط"، التي تمثل متوسط شدة مضان GFP للصورة التي تم اقتصاصها بالكامل.
- القياس الكمي RGC
- في ImageJ/Fiji، اضبط عتبة شدة صور CSLO التي تم اقتصاصها باستخدام Image > ضبط > السطوع/التباين لتحقيق التصور الأمثل لأجسام soma البيضاء الفردية على الخلفية السوداء.
ملاحظة: حدد عتبة فردية بعد مراجعة مجموعة الصور التي تم اقتصاصها ، أو قم بتطبيق خوارزمية عتبة متسقة (على سبيل المثال ، طريقة هوانغ5 في ImageJ / Fiji). بالنسبة لطريقة هوانغ: (1) تحويل الصور إلى تدرج رمادي 8 بت (الصورة > النوع > 8 بت). (2) قم بالوصول إلى أداة العتبة (Image > Adjust > Threshold). (3) حدد هوانغ كطريقة العتبة. (4) قم بمعاينة التجزئة وانقر فوق تطبيق. سيتم حساب الحد تلقائيا وعرضه على الرسم البياني للصورة. - قم بتنشيط المكون الإضافي Cell Counter وانقر على كل RGB soma إيجابي GFP للعد. سجل العدد الإجمالي للخلايا التي تم تمييزها في المنطقة التي تم تحليلها. كرر هذه العملية لجميع الصور التي تم اقتصاصها من كل نقطة زمنية للمتابعة.
- في ImageJ/Fiji، اضبط عتبة شدة صور CSLO التي تم اقتصاصها باستخدام Image > ضبط > السطوع/التباين لتحقيق التصور الأمثل لأجسام soma البيضاء الفردية على الخلفية السوداء.
- تحليل البيانات
- قم بتصدير بيانات عدد الخلايا وشدة التألق إلى جدول بيانات أو برنامج إحصائي (على سبيل المثال ، GraphPad Prism).
- إجراء الاختبارات الإحصائية المناسبة بناء على التصميم التجريبي والفرضيات المقابلة. تفسير النتائج واستنتاجها.
النتائج
باتباع البروتوكول المقدم ، تم تصور خلايا الشبكية المختلفة وتتبعها بنجاح في الجسم الحي باستخدام مزيج من توصيل الجينات بوساطة AAV و CSLO. قام AAV2-hSyn-eGFP بتحويل RGCs بشكل فعال ، مما أدى إلى تعبير eGFP قوي في جميع أنحاء شبكية العين ، كما أكدته CSLO والتحديد المشترك مع العلامة الخاصة ب RGC ، بروتين ربط الحمض النووي الريبي مع التضفير المتعدد (RBPMS) ، الموجود على وجه التحديد في طبقة الخلية العقدية (الشكل 2 والشكل 3). أكد البروتوكول أيضا القدرة على استهداف الخلايا الدبقية في مولر باستخدام AAV9-GfaABC1D-eGFP. كشف تصور CSLO عن تعبير eGFP واسع النطاق ، وتحديدا داخل طبقات الشبكية الداخلية ، بما يتفق مع جزء التوزيع الرئيسي المعروف من Müller glia. كما أن الإشارة الإيجابية ل GFP متزامنة بشكل كبير مع مولر دبقية العلامة الجلوتامين سينثيتاز (GS) ، مما يؤكد خصوصية هذا النهج (الشكل 2E و F والشكل 3 ب). أكدت هذه النتائج من جديد تعدد استخدامات توصيل الجينات بمساعدة AAV لدراسة أنواع خلايا الشبكية المختلفة. لتأكيد القدرة على استهداف الخلايا الدبقية في مولر ، تم استخدام AAV9-GfaABC1D-eGFP. كشف تصوير CSLO عن تعبير eGFP واسع النطاق ، وتحديدا داخل طبقات الشبكية الداخلية ، بما يتفق مع التوزيع المعروف ل Müller Glia (الشكل 2E ، F). تم التحقق من صحة نمط التعبير الانتقائي هذا من خلال الدرجة العالية من التحديد المشترك الذي لوحظ بين إشارة GFP وعلامة Müller glia synthetase الجلوتامين (GS) (الشكل 3 ب).
لتحديد خصوصية وكفاءة نهج الاستهداف الفيروسي لكل من RGCs و Müller glaa ، تم إجراء تحليل تحديد الموقع المشترك لمقارنة مضان GFP مع علامات نوع الخلية القياسية (الشكل 3 ب ، د). تم تحليل ما مجموعه 6 عيون فأر. بالنسبة ل RGCs المستهدفة ب AAV2-hSyn-GFP ، كانت كفاءة التنبيغ 64٪ ± 3٪ ، بينما كانت خصوصية التنبيغ 68٪ ± 3٪. بالنسبة لدبقية مولر المستهدفة ب AAV9-GfaABC1D-GFP ، كانت كفاءة التنبيغ 58٪ ± 2٪ ، وكانت خصوصية التنبيغ 71٪ ± 2٪. توضح هذه النتائج أن نهج توصيل الجينات بوساطة AAV يتيح وضع العلامات الانتقائية لأنواع خلايا الشبكية المتميزة ، مما يسلط الضوء على تعدد استخداماته لدراسة العمليات الخلوية والجزيئية في شبكية العين.
لتقييم مدى ملاءمة CSLO للمراقبة الطولية لاضطرابات خلايا الشبكية ، تم إجراء نموذج ONC عابر في الفئران المصابة ب AAV2-hSyn-eGFP. لوحظ انخفاض تدريجي في إشارة eGFP وأرقام RGC على مدى أسبوعين (الشكل 4). تم قياس بقاء RGC بثلاثة مقاييس: شدة مضان CSLO ، وعدد الخلايا في الجسم الحي لصور CSLO ، وتعداد RGC خارج الجسم الحي للخلايا الإيجابية ل RBPMS. بعد معالجة الصور كما هو موضح في الخطوة 4 ، تم اقتصاص ما لا يقل عن 10 مناطق ذات أهمية (ROIs) من كل شبكية (إجمالي 6 عيون) ، مما يضمن أن كل عائد استثمار يشمل نفس موقع الشبكية ويظهر إشارات خلوية واضحة في كل نقطة زمنية. ثم تم قياس شدة مضان CSLO عن طريق قياس متوسط الشدة داخل كل عائد استثمار تم اقتصاصه في كل نقطة زمنية. في الجسم الحي ، تم الحصول على عدد الخلايا عن طريق حساب RGCs الفردية الإيجابية ل GFP يدويا ضمن نفس عائد الاستثمار المقطوع في كل نقطة زمنية. أخيرا ، تم حصاد شبكية العين من أجل تلطيخ مناعي RBPMS ، وتم حساب الخلايا الإيجابية ل RBPMS داخل 24 منطقة محددة تم تصويرها لكل قطاع شبكية لكل شبكية. تم العثور على ارتباطات سلبية كبيرة بين جميع مقاييس بقاء RGC الثلاثة (شدة مضان CSLO ، وعدد الخلايا في الجسم الحي ، وعدد الخلايا الإيجابية RBPMS خارج الجسم الحي ) والوقت بعد ONC (ص < 0.001 للجميع ، الشكل 4C) ، مما يدل على فقدان RGC التدريجي وتنكسه. الأهم من ذلك ، لم يتم ملاحظة أي فروق ذات دلالة إحصائية عبر المجموعات التجريبية المختلفة من حيث كثافة RGC الأولية أو معدل الانخفاض ، مما يشير إلى الاتساق الإجمالي في نموذج ONC ونهج التصوير. تتوافق هذه النتائج مع الدراسات السابقة حول ضرر RGC بعد ONC وتتحقق من فعالية هذا البروتوكول المستند إلى CSLO كأداة غير جراحية وموثوقة لمراقبة صحة RGC.
لمزيد من التحقيق في الإسقاطات المحورية RGC داخل المسار البصري ، تم استخدام نهج وضع العلامات المزدوجة مع مزيج من وضع العلامات eGFP بوساطة AAV مع الوحدة الفرعية لسم الكوليرا المتتبع الأمامي B (CTB) 24. تلقت الفئران حقنة داخل الجسم الزجاجي من CTB وتم التضحية بها بعد يومين للتحليل النسيجي. أكد تحديد موقع إشارات eGFP و CTB في الأعصاب البصرية التتبع الإيجابي لمحاور RGC (الشكل 5 أ). لمزيد من الدراسة لتغيرات الإشارات بعد الإصابة المحورية ، تعرضت الفئران لسحق العصب البصري أحادي الجانب (ONC) ، وهو نموذج لضرر RGC الحاد25. لفترة وجيزة ، تم تخدير الفئران ، وتم الكشف عن عصب بصري واحد وسحقه على بعد حوالي 1 مم خلف الكرة الأرضية باستخدام ملقط دقيق لمدة 5 ثوان ، مما أدى إلى بضع إبطال RGC كبير وتنكس لاحق. بعد إصابة ONC ، لوحظ انخفاض ملحوظ في كل من كثافة eGFP و CTB ، مما يشير إلى فقدان كبير للألياف العصبية واضطراب النقل المحوري. كشف تحليل إضافي لأقسام الدماغ عن إسقاطات RGC على القولون العلوي (SC) ، وهو هيكل في الدماغ المتوسط يشارك في التكامل الحسي الحركي وحركات العين ، والنواة الركبية الجانبية (LGN) ، مركز الترحيل الأساسي للمعلومات المرئية إلى القشرة البصرية. بعد ONC ، تم الكشف عن انخفاض شدة GFP في الجانب المقابل للإصابة (الشكل 5B-E). توضح هذه النتائج فائدة هذه الطريقة لدراسة التنكس المحوري RGC ورسم خرائط أنماط الإسقاط الخاصة بها في الجسم الحي ، مما يوفر بديلا محتملا لطرق التتبع الغازية التقليدية.

الشكل 1: نظام التصوير بمنظار العين بالليزر المسح الضوئي متحد البؤر (CSLO) وواجهة لوحة التحكم للتصوير المباشر للشبكية. (A-D) مكونات نظام التصوير: تصور هذه الصور المكونات الرئيسية لجهاز HRA CSLO. (أ) تم ضبط ذراع المرشح على الموضع "A" للتصوير المشترك انعكاس الأشعة تحت الحمراء (IR) وتصوير الأوعية بالفلورسين (FA). (ب) يضبط مقبض التركيز البؤري الدقيق للعدسة الشيئية. (ج) يسمح المعالج الدقيق بتحديد المواقع الدقيقة ومحاذاة وإضاءة شعاع الضوء إلى شبكية العين بدقة من خلال درجات متعددة من الحرية (على سبيل المثال ، محاور X و Y و Z) والدوران. (د) يتحكم مقبض الحساسية في سطوع كل من صور الأشعة تحت الحمراء وFA عن طريق ضبط تضخيم إشارة الضوء المكتشفة. يؤدي الضغط على المقبض إلى بدء حساب متوسط الصورة ، والذي يجمع بين إطارات متعددة لتقليل التشويش وتحسين نسبة الإشارة إلى الضوضاء. (E-H) واجهة لوحة التحكم: تعرض لقطات الشاشة لوحة تحكم CSLO مع الإعدادات المستخدمة للحصول على الصور الحية وتصورها. (ه) بدء تشغيل لوحة التحكم في الاستحواذ. (F) يوصى بوضع الدقة العالية للحصول على جودة الصورة المثلى. (ز) يتم تمييز إعدادات التصوير بالأشعة تحت الحمراء ، مما يسمح بتصور هياكل الشبكية والأوعية الدموية. (ح) تعرض إعدادات التصوير FA خيارات لكل من التصوير الفلوري أحادي النقطة ومتعدد النقاط ، مما يتيح اكتشاف إشارات الفلورسنت داخل خلايا الشبكية. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 2: تصوير CSLO في الجسم الحي لخلايا الشبكية المصنفة بالفلورسنت بعد تعداء AAV في الفئران C57. (أ) الجدول الزمني التجريبي للتصوير الطولي بمساعدة CSLO بعد تعداء AAV في عين الفأر. (ب) صور CSLO التمثيلية للمناطق العلوية والمركزية لشبكية الفأر C57 بعد 4 أسابيع من تعبير AAV2-hSyn-eGFP. شريط المقياس: 500 ميكرومتر. (ج) يعرض مونتاج الشبكية المخيط يدويا من (B) توزيع خلايا الشبكية التي تعبر عن eGFP. شريط المقياس: 500 ميكرومتر. (D) صورة CSLO مكبرة للمنطقة المعبأة في (C) وصورة المجهر متحد البؤر المقابلة لتثبيت شبكية العين المسطح. يؤكد التحديد المشترك ل eGFP (أخضر) مع علامة RGC RBPMS (أحمر) التعبير بوساطة AAV في الخلايا العقدية الشبكية (أمثلة محاطة بدائرة). شريط المقياس: 50 ميكرومتر. (E) مونتاج مخيط يدويا لشبكية الفأر C57 بعد 4 أسابيع من الحقن باستخدام AAV9-GfaABC1D-eGFP ، مما يدل على تعبير eGFP الخاص ب Müller glia. شريط المقياس: 500 ميكرومتر. (F) صورة CSLO مكبرة للمنطقة المعبأة في (E) وصورة المجهر متحد البؤر المقابلة لجبل مسطح في الشبكية. يؤكد تحديد موقع eGFP (الأخضر) مع مولر دبقية العلامة الجلوتامين سينثيتاز (GS ، أحمر) التعبير بوساطة AAV في خلايا مولر الدبقية (أمثلة محاطة بدائرة). شريط المقياس: 50 ميكرومتر. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 3: خصوصية نوع الخلية لتوصيل الجينات بوساطة AAV في شبكية الفأر. (أ) الكيمياء المناعية لقسم الشبكية والتركيب المسطح من الفئران C57 بعد 4 أسابيع من عدوى AAV2-hSyn-eGFP. يؤكد تحديد موقع GFP (الأخضر) مع RBPMS (الأحمر) التعبير الخاص ب RGC. شريط المقياس: 50 ميكرومتر. (ب) التقدير الكمي لكفاءة وخصوصية نقل التنبيغ AAV2-hSyn-GFP في RGCs. يتم تمثيل الكفاءة على أنها النسبة المئوية ل RGCs الإيجابية RBPMS التي تعبر أيضا عن GFP في التثبيت المسطح لشبكية العين. يتم تمثيل الخصوصية على أنها النسبة المئوية للخلايا الإيجابية ل GFP والتي تكون أيضا إيجابية ل RBPMS في قسم الشبكية (ن = 6 عيون من 4 فئران). (ج) تلطيخ التألق المناعي لقسم الشبكية والتركيب المسطح من الفئران C57 بعد 4 أسابيع من عدوى AAV9-GfaABC1D-eGFP. يؤكد التوطين المشترك ل GFP (الأخضر) مع GS (الأحمر) التعبير الخاص ب Müller glia. شريط المقياس: 50 ميكرومتر. (د) القياس الكمي لكفاءة وخصوصية نقل التنبيغ AAV9-GfaABC1D-GFP في Müller glia. يتم تمثيل الكفاءة على أنها النسبة المئوية ل Müller الدبقية الإيجابية GS التي تعبر أيضا عن GFP في الشبكية المسطحة. يتم تمثيل الخصوصية على أنها النسبة المئوية للخلايا الإيجابية ل GFP والتي تكون أيضا إيجابية ل GS في قسم الشبكية (ن = 6 عيون من 3 فئران). الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 4: مراقبة CSLO الطولية لبقاء RGC بعد سحق العصب البصري الحاد (ONC) في فئران AAV2-hSyn-eGFP. (أ) رسم تخطيطي للجدول الزمني التجريبي لإصابة العصب البصري الحادة بعد عدوى AAV. (ب) تصوير CSLO الطولي لنفس شبكية العين في فأر AAV2-hSyn-eGFP عند خط الأساس ، 7 أيام و 14 يوما بعد ONC ، تصور RGCs التي تعبر عن إشارات GFP. يتم عرض الصور المكبرة للمناطق المعبأة على اليمين ، جنبا إلى جنب مع صور المجهرية متحدة البؤر التمثيلية للحوامل المسطحة في الشبكية التي توضح مورفولوجيا RGC وتوزيعها. أشرطة المقياس: 100 ميكرومتر (C) تم تقييم القياس الكمي لبقاء RGC على مدى أسبوعين بعد ONC عن طريق قياس النسبة المئوية للتغيير في كل من عدد الخلايا وشدة الفلورسنت CSLO بالنسبة لخط الأساس (متوسط ± SEM). لم تلاحظ فروق ذات دلالة إحصائية بين المجموعات في كل نقطة زمنية (ANOVA أحادي الاتجاه). كشف تحليل الانحدار الخطي عن ارتباطات سلبية ذات دلالة إحصائية بين الوقت بعد الإصابة ومقاييس بقاء RGC بناء على مضان GFP (r² = 0.945 ، ص < 0.001) ، تلطيخ RBPMS (r² = 0.888 ، ص < 0.001) ، عدد خلايا CSLO (r² = 0.511 ، ص < 0.001) ، وشدة الفلورسنت CSLO (r² = 0.7486 ، ص < 0.001). ن = 6 فئران / مجموعة / نقطة زمنية. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
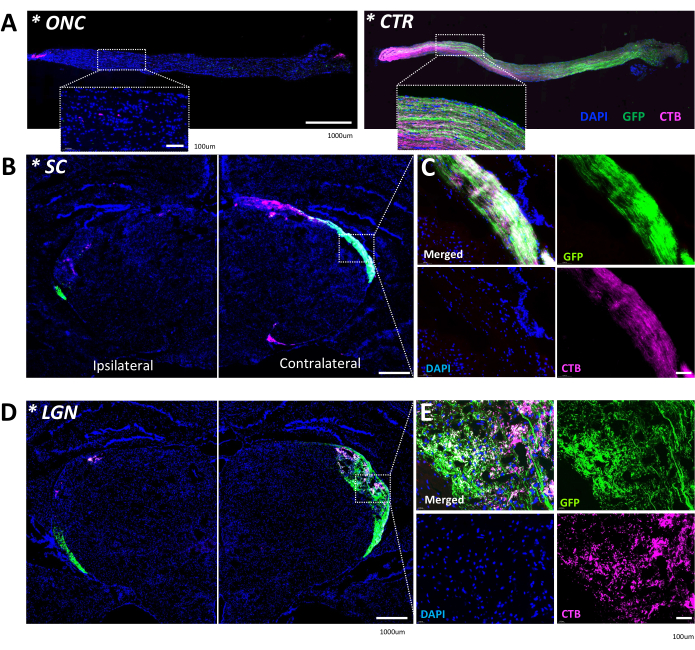
الشكل 5: رسم الخرائط بمساعدة AAV للإسقاطات المحورية RGC على طول المسار البصري. (أ) صور مجهرية فلورية تمثيلية لزوج من الأعصاب البصرية من فأر AAV2-hSyn-eGFP ، مما يدل على محاور RGC المسماة GFP (أخضر) وتحديد الموقع مع توكسين الكوليرا المحوري الأمامي B (CTB ، أرجواني). توفر اللوحة العلوية نظرة عامة على الأعصاب البصرية بأكملها (شريط المقياس: 1000 ميكرومتر) ، بينما توفر اللوحة السفلية مناظر مكبرة للمناطق المعبأة (شريط المقياس: 100 ميكرومتر). بعد أسبوعين من إصابة ONC ، تظهر كل من إشارات GFP و CTB انخفاضا ملحوظا في جميع أنحاء العصب البصري (الجانب الأيسر) ، مما يشير إلى فقدان واضطراب RGC المحوري على طول المسار البصري. (ب) الإسقاطات المحورية RGC على القولون العلوي (SC). أقسام الدماغ الإكليلية من فأر AAV2-hSyn-eGFP 2 أسابيع بعد ONC تسليط الضوء على محاور RGC المسماة GFP (الأخضر) وتلوين CTB (أرجواني) داخل SC. اليسار (L): SC المقابل; اليمين (R): SC المماثل (الجانب المصاب ONC). شريط المقياس: 1000 ميكرومتر. (ج) يوضح العرض المكبر للمنطقة المحصورة في (B) تحديد موقع إشارات GFP و CTB (الصورة المدمجة) ، مع تسليط الضوء على حزم RGC المحورية وأنماط إسقاطها داخل SC. شريط المقياس: 100 ميكرومتر. (د) الإسقاطات المحورية RGC للنواة الركبية الجانبية (LGN) بعد ONC ، مما يكشف عن محاور RGC المسماة GFP (الأخضر) وتلوين CTB (أرجواني) داخل LGN. اليسار (L): LGN المقابل; اليمين (R): LGN المماثل (الجانب المصاب ONC). شريط المقياس: 1000 ميكرومتر. (E) يسلط العرض المكبر للمنطقة المحصورة في (D) الضوء على الحزم المحورية RGC وأنماط إسقاطها داخل LGN. شريط المقياس: 100 ميكرومتر. الرجاء النقر هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
يوضح البروتوكول المقدم بالتفصيل طريقة قوية ويمكن الوصول إليها للمراقبة في الجسم الحي لمجموعات معينة من خلايا الشبكية ، وتسخير قوة كل من توصيل الجينات بوساطة AAV وتصوير CSLO. يقدم هذا النهج العديد من المزايا مقارنة بالطرق التقليدية ، مما يسهل الدراسات الطولية لديناميكيات خلايا الشبكية واستجاباتها للإصابة أو المرض في ظل الظروف الفسيولوجية أو المرضية.
يتوقف نجاح هذه الطريقة على عدة خطوات حاسمة. أولا ، يعد تحقيق الكفاءة المثلى في نقل AAV أمرا محوريا للتعبير القوي والمحدد عن مراسل الفلورسنت في مجموعة الخلايا المستهدفة. يمكن أن يتأثر هذا بعوامل مثل اختيار النمط المصلي AAV ، والعيار الفيروسي ، وتقنيةالحقن 13،15،16. ثانيا ، يعد التعامل السليم مع وضبط النفس أثناء تصوير CSLO أمرا ضروريا لتقليل القطع الأثرية للحركة والحفاظ على جودة الصورة. يساهم استخدام منصة تصوير مصممة خصيصا وتجنب التخدير العام في تحقيق تصور واضح ومتسق لهياكل الشبكية. ثالثا ، يعد التحسين الدقيق لمعلمات تصوير CSLO ، بما في ذلك التركيز والحساسية وإعدادات المتوسط ، ضروريا للحصول على صور عالية الدقة بأقل قدر من الضوضاء ونسبة الإشارة إلى الضوضاء المثلى26. أخيرا ، لمعالجة القيود المحتملة وضمان موثوقية البيانات ، قمنا بتنفيذ تدابير صارمة لمراقبة جودة الصورة وزيادة أعداد في تصميم دراستنا.
يتميز نظام Spectralis HRA CSLO بتتبع تلقائي للعين يعزز التصوير الطولي السريري. يمكن لوظيفة التتبع التلقائي في الوقت الفعلي (ART) أن تغلق على منطقة معينة من الشبكية أثناء التصوير ، مما يقلل من القطع الأثرية للحركة. بالنسبة للتصوير السريري البشري ، يشتمل النظام أيضا على خوارزمية للتتبع طويل المدى لنفس موقع الشبكية التشريحي27. ومع ذلك ، لم يتم تحسين هذه التقنيات لدراسات القوارض بسبب الاختلافات التشريحية الكبيرة بين عيون الإنسان والقوارض. عيون القوارض أصغر بكثير (قطرها 3-4 مم مقارنة ب 24 مم في البشر) وتفتقر إلى بعض المعالم مثل البقعة ، مما يمثل تحديات فريدة للتتبع الآلي28. وبالتالي ، يعتمد الباحثون الذين يدرسون نماذج القوارض بشكل أساسي على الطرق اليدوية ، باستخدام المعالم التشريحية مثل أنماط الأوعية الدموية ورأس العصب البصري لتحديد مناطق معينة في الشبكية والحفاظ على مستويات تصوير متسقة عبر الجلسات13،22. هذا النهج ضروري ليس فقط بسبب المعالم المحدودة في عيون القوارض ولكن أيضا بسبب التغيرات الجوهرية المحتملة في الشبكية الناجمة عن التلاعب التجريبي ، والتي يمكن أن تربك الأنظمة الآلية غير المصممة لهذه التحديات المحددة. وبالتالي ، فإن تطوير خوارزميات متخصصة لتتبع العين ومحاذاة العين لتصوير شبكية القوارض يمثل اتجاها مستقبليا حاسما. على وجه الخصوص ، يمكن أن يؤدي تكييف خوارزميات التتبع طويلة الأجل لاستخدام الصغيرة إلى تعزيز دقة الدراسات الطولية وقابليتها للتكرار بشكل كبير.
في حين أن التقنيات النسيجية التقليدية تتطلب التضحية بالحيوانات وتمنع الدراسات الطولية ، فإن طريقة التصوير CSLO بمساعدة AAV تقدم نهجا غير جراحي لمراقبة ديناميكيات خلايا الشبكية في الجسم الحي. يعتمد هذا النهج على العمل السابق الذي يوضح فائدة تصوير cSLO لتتبع التغيرات الطولية في خلايا شبكية معينة بعد الإصابة ، لا سيما في النماذج الحيوانية التي تستخدم ملصقات البروتين الفلوري المعدل وراثيا19،21،22،29. سلطت هذه الدراسات الضوء على قدرة CSLO على تصور مجموعة من أحداث خلايا الشبكية في الجسم الحي ، بما في ذلك موت الخلايا ، والبقاء على قيد الحياة ، وربما حتى الهجرة أو نمو العملية. يوسع هذا البروتوكول تطبيق هذه التقنية لدراسة التنبيغ بوساطة AAV لمجموعات معينة من خلايا الشبكية ، مما يسمح لنا بمراقبة الآثار طويلة المدى لتوصيل AAV والتعبير الجينات المعدلة داخل شبكية العين وتقديم رؤى مهمة حول تطور أمراض الشبكية وفعالية التدخلات العلاجية. تركز التقييمات السريرية الحالية باستخدام OCT بشكل أساسي على فقدان محور RGC عن طريق قياس سمك طبقة الألياف العصبية في الشبكية9 ، لكنها تفتقر إلى الدقة لتقييم مورفولوجيا RGC الفردية أو إصابة الخلايا الدبقية. على الرغم من أن AO-SLO يتيح التصوير على المستوى الخلوي في شبكية العين البشريةالحية 10 ، إلا أن تعقيدها وتوافرها المحدود يحدان من استخدامها بشكل أساسي في إعدادات البحث. بالإضافة إلى ذلك ، غالبا ما يتطلب التمييز بين أنواع الخلايا الدبقية داخل AO-SLO طرق وضع العلامات الإضافية30. تتغلب هذه الطريقة على هذه القيود من خلال توفير نهج أكثر شمولا ويمكن الوصول إليه لتصور وتتبع RGCs الفردية ومجموعات خلايا الشبكية الأخرى المصنفة بالفلورسنت بمرور الوقت. هذا يفتح طرقا للتحقيق في الاستجابات الخلوية في ظل ظروف مختلفة ، مما يساعد في تطوير العلاجات المستهدفة. علاوة على ذلك ، فإن الجمع بين تصوير CSLO بمساعدة AAV مع علم البصرياتالوراثي 31 أو تصوير الكالسيوم32 يمكن أن يزيد من تعميق فهم وظيفة خلية الشبكية وأدوارها في المعالجة البصرية وتطوير الدوائر والتجديد.
وعلى الرغم من قوة هذا النهج، ينبغي الاعتراف ببعض القيود والاعتبارات المحتملة لاستكشاف الأخطاء وإصلاحها. يمكن أن يحدث التباين في كفاءة نقل AAV ، مما يستلزم تحسين معلمات الحقن أو العيار الفيروسي لأنواع معينة من الخلايا أو الظروف التجريبية. يمكن أن يتأثر تصوير CSLO بعوامل مثل عتامة القرنية وعدم استقرار الأغشية المسيلة للدموع وحركات العين ، مما يتطلب مراقبة وتعديلات دقيقة أثناء الحصول على الصورة. بالإضافة إلى ذلك ، فإن عمق الاختراق المحدود ل CSLO يقيد التصور إلى طبقات الشبكية الداخلية ، مما قد يستبعد الهياكل الأعمق مثل المستقبلات الضوئية33. يسمح نظام Spectralis cSLO بالتصور الواضح للميزات والأنماط الخلوية المميزة داخل شبكيةالعين 34. في حين أن طريقة التصوير هذه يمكن أن تسهل مراقبة الخلية المفردة في ظل ظروف معينة ، كما هو موضح في عمل سابق يصور RGCs الفردية في فئران Thy1-YFP22 ذات العلامات المنخفضة ، إلا أنها يمكن أن تشكل تحديات لقياس الخلايا الفردية في سيناريوهات ذات علامات كثيفة. على سبيل المثال ، في هذه الدراسة ، يمكن أن يؤدي وضع العلامات الجماعية ل RGCs باستخدام eGFP بعد عدوى الشبكية بوساطة AAV في بعض الأحيان إلى إعاقة التصور الواضح للخلايا الفردية ، لا سيما في المناطق ذات الاختلافات في مستويات التعبير وتداخل الخلايا. يتفاقم هذا التحدي عند تصوير Müller glia ، حيث أن مورفولوجيتها الممدودة ، التي تمتد على سمك الشبكيةبأكملها 35 ، تجعل من الصعب التقاط خلية واحدة داخل مستوى بؤري واحد باستخدام cSLO. وبالتالي ، فإن تقييم كفاءة عدوى Müller الدبقية بوساطة AAV9 يعتمد بشكل أساسي على تقييم أنماط التنبيغ الإجمالية والتوزيع باستخدام تصوير CSLO.
علاوة على ذلك ، في حين أن متوسط ART في نظام HRA يعزز جودة الصورة ، فإن مدة المسح المتزايدة تمثل قيودا عملية ، خاصة في تصوير المستيقظة. متوسط قيمة ART المحددة البالغة 15 هو موازنة جودة الصورة مع وقت المسح الضوئي ، مما يوفر تقليل تشويش كافيا مع الحفاظ على مدة مسح معقولة. لتقليل الانزعاج والإجهاد الحيواني ، يجب تحسين إجراءات التصوير من أجل الكفاءة ، وتوظيف موظفين مدربين ماهرين في التعامل مع المستيقظة وتصويرها ، ومراقبة بجد بحثا عن علامات الانزعاج أو جفاف القرنية خلال جلسات التصوير. كانت هذه التدابير حاسمة لضمان جودة البيانات ورفاهية ، مما يسلط الضوء على أهمية مراعاة كلا العاملين عند استخدام متوسط العلاج المضاد للفيروسات القهقرية لتصوير الشبكية في الجسم الحي في نماذج المستيقظة.
من خلال الاعتراف بهذه القيود والمصادر المحتملة للتباين ، يمكن للباحثين اتخاذ الخطوات المناسبة لتحسين بروتوكولات التصوير ، وتقليل القطع الأثرية ، وضمان موثوقية بياناتهم وقابليتها للتكرار.
بشكل عام ، توفر هذه الطريقة التي يمكن الوصول إليها والقابلة للتنفيذ بسهولة وسيلة قوية للتحقيق في التفاعل المعقد بين RGCs و Müller glia ، خاصة في الاستجابة للإصابة أو المرض. من خلال تمكين الباحثين من تصور هذه التفاعلات الديناميكية وتحديدها كميا ، يسهل هذا النهج اكتشاف آليات خلوية وجزيئية جديدة تكمن وراء أمراض الشبكية. وهذا بدوره يلقي الضوء على تطوير استراتيجيات علاجية مستهدفة وتدابير مضادة محسنة للمرض.
الإفصاحات
المؤلفون ليس لديهم ما يكشفون عنه.
شكر وتقدير
تم دعم هذا العمل بمنحة من المؤسسة الوطنية للعلوم الطبيعية في الصين (82130029). تم إنشاء الشكل 2 أ والشكل 4 أ باستخدام BioRender.com.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 33 مقياس إبرة | هاميلتون كورب ، رينو ، نيفادا ، الولايات المتحدة الأمريكية | 7803-05 | للحقن داخل الجسم الزجاجي |
| 0.5٪ بروباراكايين ؛ | Santen الصيدلانية المحدودة | تخدير المخفوق الموضعي | |
| AAV2-hSyn-eGFP | OBiO Technology Corp. ، الصين | عيار الفيروسات: 2.7 × 10¹²< / sup> الجينومات الفيروسية (vg) / mL & nbsp ؛ | |
| AAV9-GfaABC1D-eGFP | WZ Biosciences Inc. ، الصين | عيار الفيروسات: 4.5 × 10¹²< / sup> الجينومات الفيروسية (vg) / mL ؛ | |
| Betadine | Healthy الطبية | 001651 | المطهرات الموضعية |
| ملقط القرنية الروحي (مسننة) | Mingren Eye Instruments ، الصين | MR-F301A | لتأمين الجفن أثناء الحقن داخل الجسم الزجاجي |
| Dumont 05 # ملقط | FST | 51-AGT5385 | لسحق العصب البصري |
| Graphpad prism | GraphPad Prism ، الولايات المتحدة | الأمريكية رسم الرسم البياني والتحليل الإحصائي | |
| HRA Spectralis | Heidelberg Engineering ، GmbH ، Dossenheim ، ألمانيا | وضع "IR" و "FA" لتصوير CSLO | |
| Image J / Fiji | National Institute of Health ، الولايات المتحدة الأمريكية | معالجة الصور | |
| مرهم المضادات الحيوية Maxitrol | Alcon Laboratories، INC. الولايات المتحدة الأمريكية | 0065-0631 | المضادات الحيوية الموضعية |
| حقنة ميكرولتر | هاميلتون كورب ، رينو ، نيفادا ، الولايات المتحدة الأمريكية | 7633-01 | للحقن داخل الجسم الزجاجي |
| Mydrin-P محلول العيون | Santen Pharmaceutical Co.، Ltd ، اليابان | لتوسيع التلميذ | |
| ؛ | Leica AG ، Heerbrugg ، سويسرا | M220 | للعمليات الجراحية |
| Pentorbarbitol الصوديوم | Sigma Aldrich ، الولايات المتحدة الأمريكية | 57-33-0 | Genereal Aneasthetics |
| Powerpoint Microsoft Corporation ، الولايات المتحدة الأمريكية | محاذاة الصورة واقتصاص | ||
| VISCOTEARS Liquid Gel (Carbomer) | الدكتور جيرهارد مان ، Chem.-Pharm. Fabrik ، ألمانيا | زيوت التشحيم الموضعية |
المراجع
- Cheung, C. Y., Ikram, M. K., Chen, C., Wong, T. Y. Imaging retina to study dementia and stroke. Prog Retin Eye Res. 57, 89-107 (2017).
- Ju, W. K., et al. Glaucomatous optic neuropathy: Mitochondrial dynamics, dysfunction and protection in retinal ganglion cells. Prog Retin Eye Res. 95, 101136(2023).
- Vecino, E., Rodriguez, F. D., Ruzafa, N., Pereiro, X., Sharma, S. C. Glia-neuron interactions in the mammalian retina. Prog Retin Eye Res. 51, 1-40 (2016).
- Llorián-Salvador, M., Cabeza-Fernández, S., Gomez-Sanchez, J. A., De La Fuente, A. G. Glial cell alterations in diabetes-induced neurodegeneration. Cell Mol Life Sci. 81 (1), 47(2024).
- Zhao, N., Hao, X. N., Huang, J. M., Song, Z. M., Tao, Y. Crosstalk between microglia and müller glia in the age-related macular degeneration: Role and therapeutic value of neuroinflammation. Aging Dis. 15 (3), 1132-1154 (2023).
- Minhas, G., Sharma, J., Khan, N. Cellular stress response and immune signaling in retinal ischemia-reperfusion injury. Front Immunol. 7, 444(2016).
- Miao, Y., Zhao, G. L., Cheng, S., Wang, Z., Yang, X. L. Activation of retinal glial cells contributes to the degeneration of ganglion cells in experimental glaucoma. Prog Retin Eye Res. 93, 101169(2023).
- Leung, C. K. S., et al. Diagnostic assessment of glaucoma and non-glaucomatous optic neuropathies via optical texture analysis of the retinal nerve fibre layer. Nat Biomed Eng. 6 (5), 593-604 (2022).
- Hood, D. C., et al. Detecting glaucoma with only OCT: Implications for the clinic, research, screening, and AI development. Prog Retin Eye Res. 90, 101052(2022).
- Burns, S. A., Elsner, A. E., Sapoznik, K. A., Warner, R. L., Gast, T. J. Adaptive optics imaging of the human retina. Prog Retin Eye Res. 68, 1-30 (2019).
- Dinculescu, A., Glushakova, L., Min, S. H., Hauswirth, W. W. Adeno-associated virus-vectored gene therapy for retinal disease. Hum Gene Ther. 16 (6), 649-663 (2005).
- Nickells, R. W., Schmitt, H. M., Maes, M. E., Schlamp, C. L. AAV2-mediated transduction of the mouse retina after optic nerve injury. Invest Ophthalmol Vis Sci. 58 (14), 6091-6104 (2017).
- Cao, X., Yung, J., Mak, H., Leung, C. K. S. Factors governing the transduction efficiency of adeno-associated virus in the retinal ganglion cells following intravitreal injection. Gene Ther. 26 (3-4), 109-120 (2019).
- Vandenberghe, L. H., et al. Dosage thresholds for AAV2 and AAV8 photoreceptor gene therapy in monkey. Sci Transl Med. 3 (88), 88ra54(2011).
- Gao, Y., et al. Develop an efficient and specific AAV-based labeling system for Muller glia in mice. Sci Rep. 12 (1), 22410(2022).
- Nieuwenhuis, B., et al. Improving adeno-associated viral (AAV) vector-mediated transgene expression in retinal ganglion cells: Comparison of five promoters. Gene Ther. 30 (6), 503-519 (2023).
- Kawabata, H., et al. Improving cell-specific recombination using AAV vectors in the murine CNS by capsid and expression cassette optimization. Mol Ther Methods Clin Dev. 32 (1), 101185(2024).
- Smith, C. A., Chauhan, B. C. In vivo imaging of adeno-associated viral vector labelled retinal ganglion cells. Sci Rep. 8 (1), 1490(2018).
- Smith, C. A., Chauhan, B. C. Imaging retinal ganglion cells: Enabling experimental technology for clinical application. Prog Retin Eye Res. 44, 1-14 (2015).
- Leung, C. K. S., et al. Longitudinal profile of retinal ganglion cell damage after optic nerve crush with blue-light confocal scanning laser ophthalmoscopy. Invest Ophthalmol Vis Sci. 49 (11), 4898(2008).
- Leung, C. K. S., et al. In vivo imaging of murine retinal ganglion cells. J Neurosci Methods. 168 (2), 475-478 (2008).
- Mak, H. K., Ng, S. H., Ren, T., Ye, C., Leung, C. K. S. Impact of PTEN/SOCS3 deletion on amelioration of dendritic shrinkage of retinal ganglion cells after optic nerve injury. Exp Eye Res. 192, 107938(2020).
- Kokona, D., Jovanovic, J., Ebneter, A., Zinkernagel, M. S. In Vivo imaging of Cx3CR1GFP/GFP reporter mice with spectral-domain optical coherence tomography and scanning laser ophthalmoscopy. J Vis Exp. (129), e55984(2017).
- Abbott, C. J., et al. Imaging axonal transport in the rat visual pathway. Biomed Opt Express. 4 (2), 364-386 (2013).
- Levkovitch-Verbin, H., et al. RGC death in mice after optic nerve crush injury: Oxidative stress and neuroprotection. Invest Ophthalmol Vis Sci. 41 (13), 4169-4174 (2000).
- LaRocca, F., et al. Optimization of confocal scanning laser ophthalmoscope design. J Biomed Opt. 18 (7), 076015(2013).
- Vienola, K. V., et al. Real-time eye motion compensation for OCT imaging with tracking SLO. Biomed Opt Express. 3 (11), 2950-2963 (2012).
- Geng, Y., et al. Optical properties of the mouse eye. Biomed Opt Express. 2 (4), 717-738 (2011).
- Bosco, A., Romero, C. O., Ambati, B. K., Vetter, M. L. In vivo dynamics of retinal microglial activation during neurodegeneration: Confocal ophthalmoscopic imaging and cell morphometry in mouse glaucoma. J Vis Exp. (99), e52731(2015).
- Joseph, A., Power, D., Schallek, J. Imaging the dynamics of individual processes of microglia in the living retina in vivo. Biomed Opt Express. 12 (10), 6157-6170 (2021).
- Chaffiol, A., et al. A new promoter allows optogenetic vision restoration with enhanced sensitivity in macaque retina. Mol Ther. 25 (11), 2546-2560 (2017).
- Li, L., et al. Longitudinal in vivo Ca2+ imaging reveals dynamic activity changes of diseased retinal ganglion cells at the single-cell level. Proc Natl Acad Sci U S A. 119 (48), e2206829119(2022).
- Bille, J. F. Optical Coherence Tomography (OCT): Principle and technical realization. High-resolution imaging in microscopy and ophthalmology: New Frontiers in Biomedical Optics. , Springer International Publishing. 59-85 (2019).
- Spaide, R. F., et al. Lateral resolution of a commercial optical coherence tomography instrument. Transl Vis Sci Technol. 11 (1), 28(2022).
- Franze, K., et al. Muller cells are living optical fibers in the vertebrate retina. Proc Natl Acad Sci U S A. 104 (20), 8287-8292 (2007).
إعادة الطباعة والأذونات
الوسوم
تم نشر هذه المقالة
الفيديو قريباً