نقدم هنا بروتوكولا لزرع الخلايا بدقة مكانية وزمانية عالية في أجنة الزرد واليرقات في أي مرحلة بين 1 و 7 أيام على الأقل بعد الإخصاب.
مقالة منهجية
زرع الخلايا عالية الدقة في الزرد الجنيني واليرقات
في هذه المقالة
ملخص
الملخص
يحدث التطور والتجديد من خلال عملية التفاعلات الخلوية الديناميكية المكانية الزمانية المشفرة وراثيا. يعد استخدام زرع الخلايا بين لتتبع مصير الخلية وإحداث عدم تطابق في الخصائص الجينية أو المكانية أو الزمانية للخلايا المانحة والمضيفة وسيلة قوية لفحص طبيعة هذه التفاعلات. قدمت الكائنات الحية مثل الفرخ والبرمائيات مساهمات حاسمة في فهمنا للنمو والتجديد ، على التوالي ، ويرجع ذلك إلى حد كبير إلى قابليتها للزرع. ومع ذلك ، كانت قوة هذه النماذج محدودة بسبب انخفاض قابلية السحب الجيني. وبالمثل ، فإن الكائنات الحية النموذجية الجينية الرئيسية لديها قابلية أقل للزرع.
يعتبر الزرد نموذجا وراثيا رئيسيا للتطور والتجديد ، وعلى الرغم من أن زرع الخلايا شائع في الزرد ، إلا أنه يقتصر عموما على نقل الخلايا غير المتمايزة في المراحل المبكرة من تطور البلاستولا والمعدة. في هذه المقالة ، نقدم طريقة بسيطة وقوية تمتد نافذة زراعة الزرد إلى أي مرحلة جنينية أو يرقية بين 1 و 7 أيام على الأقل بعد الإخصاب. تسمح دقة هذا النهج بزرع أقل من خلية واحدة بدقة مكانية وزمانية شبه مثالية في كل من المانحة والمضيفة. بينما نسلط الضوء هنا على زرع الخلايا العصبية الجنينية واليرقات لدراسة تطور الأعصاب وتجديدها ، على التوالي ، فإن هذا النهج ينطبق على مجموعة واسعة من أنواع الخلايا السلفية والمتمايزة وأسئلة البحث.
المقدمة
زرع الخلايا له تاريخ طويل وحافل كتقنية أساسية في علم الأحياء التنموي. في مطلعالقرن العشرين ، حولت الأساليب التي تستخدم التلاعب الجسدي لإزعاج العملية التنموية ، بما في ذلك الزرع ، علم الأجنة من علم قائم على الملاحظة إلى علم تجريبي 1,2. في إحدى التجارب التاريخية، قام هانز سبيمان وهيلدا مانغولد بزرع الشفة الظهرية لجنين السمندل على الجانب الآخر من الجنين المضيف، مما أدى إلى تحفيز الأنسجة القريبة على تشكيل محور جسم ثانوي3. أظهرت هذه التجربة أن الخلايا يمكن أن تحفز الخلايا الأخرى على تبني مصائر معينة ، وبعد ذلك ، تم تطوير عملية الزرع كطريقة قوية لاستجواب الأسئلة الحرجة في علم الأحياء التنموي فيما يتعلق بالكفاءة وتحديد مصير الخلية ، ونسب الخلية ، والقدرة الاستقرائية ، واللدونة ، وقوة الخلايا الجذعية1،4،5.
وقد وسعت التطورات العلمية الحديثة من قوة نهج الزرع. في عام 1969 ، سمح اكتشاف نيكول لو دواران أن تلطيخ النواة يمكن أن يميز الأنواع الأصلية في كيميرا كتكوت السمان بتتبع الخلايا المزروعة وذريتها6. تم تعزيز هذا المفهوم لاحقا من خلال ظهور علامات الفلورسنت المعدلة وراثيا وتقنيات التصوير المتقدمة5 ، وتم الاستفادة منه لتتبع مصير الخلية 6,7 ، وتحديد الخلايا الجذعية وقوتها 8,9 ، وتتبع حركات الخلايا أثناء نمو الدماغ10. بالإضافة إلى ذلك ، سهل ظهور علم الوراثة الجزيئية عملية الزرع بين المضيفين والمتبرعين بالأنماط الجينية المتميزة ، مما يدعم التشريح الدقيق للوظائف المستقلة وغير المستقلة للعوامل التنموية11.
قدمت عملية الزرع أيضا مساهمات مهمة في دراسة التجدد ، لا سيما في الكائنات الحية ذات القدرات التجديدية القوية مثل المستوية و axolotl ، من خلال توضيح الهويات الخلوية والتفاعلات التي تنظم نمو ونمط الأنسجة المتجددة. كشفت دراسات الزرع عن مبادئ الفاعلية12 ، والأنماط المكانية 13,14 ، ومساهمات الأنسجة المحددة15,16 ، وأدوار الذاكرة الخلوية12,17 في التجديد.
الزرد هو نموذج الفقاريات الرائد لدراسة التطور والتجديد ، بما في ذلك في الجهاز العصبي ، بسبب برامجه الوراثية المحفوظة ، وقابلية السحب الوراثية العالية ، والإخصاب الخارجي ، وحجم القابض الكبير ، والوضوح البصري18،19،20. الزرد هي أيضا قابلة للغاية للزرع في مراحل النمو المبكرة. النهج الأبرز هو زرع الخلايا من جنين متبرع مسمى إلى جنين مضيف في مرحلة البلاستولا أو المعدة لتوليد الفسيفساء. سوف تتشتت الخلايا المزروعة خلال مرحلة البلاستولا وتتشتت مع بدء epiboly ، مما ينتج عنه فسيفساء من الخلايا والأنسجة الموسومة عبر الجنين21. تسمح عمليات زرع المعدة ببعض الاستهداف للخلايا المزروعة وفقا لخريطة مصير تقريبية حيث يتشكل الدرع ويمكن تحديد محاور A-P و D-V21. كانت الفسيفساء الناتجة ذات قيمة في تحديد ما إذا كانت الجينات تعمل بشكل مستقل ، واختبار التزام الخلية ، ورسم خرائط حركة الأنسجة وهجرة الخلايا طوال فترة التطوير 5,11. يمكن توليد الزرد الفسيفسائي بعدة طرق ، بما في ذلك التثقيب الكهربائي22 ، وإعادة التركيب23 ، و F0 التحوير24 والطفرات25 ، لكن الزرع يوفر أكبر قدر من التلاعب والدقة في المكان والزمان وعدد وأنواع الخلايا. تقتصر الحالة الحالية لزراعة الزرد إلى حد كبير على الخلايا السلفية في المراحل المبكرة ، مع استثناءات قليلة بما في ذلك زرع الخلايا العصبية الحركية الشوكية26,27 ، وخلايا العقدة الشبكية28,29 ، وخلايا القمة العصبية في أول 10-30 ساعة بعد الإخصاب (HPF) 30 ، والخلايا المكونة للدم والخلايا السرطانية في الزرد البالغ 5,31. إن توسيع طرق الزرع لتشمل مجموعة واسعة من الأعمار ومراحل التمايز وأنواع الخلايا من شأنه أن يعزز بشكل كبير قوة هذا النهج لتوفير رؤى حول عمليات النمو والتجدد.
هنا ، نعرض تقنية مرنة وقوية لزراعة الخلايا عالية الدقة فعالة في أجنة الزرد واليرقات حتى 7 أيام على الأقل بعد الإخصاب. يمكن استخدام الأسماك المضيفة والمانحة المعدلة وراثيا التي تعبر عن البروتينات الفلورية في الأنسجة المستهدفة لاستخراج الخلايا المفردة وزرعها بدقة مكانية وزمانية شبه مثالية. يسمح الوضوح البصري لأجنة ويرقات الزرد بتصوير الخلايا المزروعة حية أثناء تطور المضيف أو تجديده. تم استخدام هذا النهج سابقا لدراسة كيفية تأثير ديناميكيات الإشارات الزمانية المكانية على الهوية العصبية وتوجيه المحور العصبي في الجنين32 ، وفحص المنطق الذي تعزز به العوامل الجوهرية والخارجية توجيه المحور العصبي أثناء التجدد في أسماك اليرقات33. بينما نركز هنا على زرع الخلايا العصبية المتمايزة ، فإن طريقتنا قابلة للتطبيق على نطاق واسع على كل من أنواع الخلايا غير المتمايزة والمتمايزة عبر العديد من المراحل والأنسجة لمعالجة الأسئلة في التطوير والتجديد.
البروتوكول
تمت الموافقة على جميع جوانب هذا الإجراء المتعلقة بالعمل مع الزرد الحي من قبل لجنة رعاية واستخدام المؤسسية بجامعة مينيسوتا (IACUC) ويتم تنفيذها وفقا لإرشادات IACUC.
1. الإعداد الأولي لمرة واحدة لجهاز الزرع (الشكل 1)
- قم بتجميع مجهر الزرع وفقا لتعليمات الشركة المصنعة.
ملاحظة: يستخدم هذا البروتوكول مجهرا مضانا رأسيا بهدف غمس الماء 40x. - قم بتجميع المعالجات الدقيقة الخشنة والدقيقة وقم بتركيبها على الجانب الأيمن من المجهر وفقا لتعليمات الشركة الصانعة.
ملاحظة: نظرا لأنه من المهم ألا تتحرك المرحلة في البعد Z بالنسبة للإبرة ، فإننا نستخدم مجهرا ثابتا المرحلة مع معالجات دقيقة مثبتة على قاعدة المجهر. في حالة عدم توفر مجهر المرحلة الثابتة ، يمكن تركيب المعالج الدقيق على المسرح. - قم بتوصيل حامل القطب الدقيق بمقبض القطب ، وقم بتثبيته على المناور الدقيق.
- قم بتوصيل جانب واحد من المحبس ثلاثي الاتجاهات بمضخة الحقن الدقيقة. قم بتوصيل الجانب الآخر من المحبس بأنبوب البولي إيثيلين باستخدام محول الكروماتوغرافيا.
- قم بتوصيل الجانب الآخر من أنبوب البولي إيثيلين بحامل القطب الدقيق باستخدام محول الكروماتوغرافيا.
- املأ حقنة الخزان سعة 10 مل بزيت معدني خفيف وقم بتركيبها على الجانب العلوي من المحبس.
- املأ مضخة الحقن الدقيقة والأنابيب (الخط الهيدروليكي) بالزيت المعدني من الخزان ، مع التأكد من إزالة جميع فقاعات الهواء.
ملاحظة: بمجرد إعداد الجهاز ، سيتطلب الأمر صيانة عرضية فقط للخط الهيدروليكي. يمكن إزالة حقنة الخزان وإعادة تعبئتها بالزيت المعدني حسب الضرورة.
2. إعداد دافعات الأجنة.
- قطع قطعة 2 سم من خط الصيد وأدخله جزئيا في الطرف الضيق لطرف ماصة P1000 ، وترك ~ 1.5 سم مكشوفا. تأمين خط الصيد مع قطرة صغيرة من superglue والسماح ليجف.
3. إعداد الحلول.
- لتحضير 1٪ من الأغاروز ذو درجة انصهار منخفضة مذاب في وسط الجنين (LMA) ، قم بإذابة الأغاروز في وسائط الجنين المغلي34. اصنع 1-2 مل من القسوم في أنابيب اختبار مستديرة القاع واحفظها عند 4 درجات مئوية.
- قم بإعداد محلول رينغر مع البنسلين والستربتومايسين والتريكائين (RPT) عن طريق الجمع بين المكونات التالية إلى التركيزات النهائية 116 مليمتر كلوريد الصوديوم ، 2.9 ملليمتر KCl ، 1.8 mM CaCl2 ، 5 mM HEPES pH 7.2 ، 50 وحدة / مل من البنسلين ، و 50 ميكروغرام / مل من الستربتومايسين ، مع التحريك حتى يذوب ، ويمر عبر مرشح فراغ. يحفظ في درجة حرارة الغرفة. أضف التريكايين مباشرة قبل الاستخدام بتركيز 0.02٪.
4. إعداد المانحة والمضيفة للزراعة.
- تربية المضيفة والمتبرعة من الأنماط الوراثية المناسبة ، مع الخلايا ذات الأهمية الموسومة بالفلورسنت ، إلى العمر المطلوب.
ملاحظة: بالنسبة لعمليات الزرع هذه ، استخدمنا Tg (isl1: EGFPCAAX) fh474 المانحة32 و Tg (isl1: mRFP) fh1 المضيفة35 والخلايا العصبية المزروعة من المتبرع إلى النوى الحركية المبهمة المضيفة عند 3dpf. - قم بإعداد شرائح الزرع عن طريق تطبيق مخطط مستطيل من طلاء الأظافر الشفاف على كل شريحة زجاجية (الشكل 2 أ). يخلق طلاء الأظافر حاجزا كارها للماء للاحتفاظ به في RPT المضاف في الخطوة 4.8. اتركيه حتى يجف تماما قبل الاستخدام.
ملاحظة: يمكن إعداد الشرائح مسبقا وتخزينها إلى أجل غير مسمى. - قم بإذابة حصة LMA واحدة عن طريق وضع أنبوب من LMA في دورق سعة 50 مل يحتوي على 40 مل من الماء ووضعه في الميكروويف لمدة 1 دقيقة بقوة 50٪ أو حتى يذوب. حافظ على LMA عند 40 درجة مئوية في سخان الحمام الجاف.
- قم بإزالة المضيفة والمانحة بالملقط (إن أمكن) وتخديرها عن طريق وضعها في أطباق بتري صغيرة مليئة ب RPT بدرجة حرارة الغرفة. انتظر 5 دقائق حتى يتم تخدير بالكامل قبل المتابعة.
- قم بتركيب المانحة والمضيفة الفردية: باستخدام ماصة باستور ومضخة الماصة ، انقل من RPT إلى LMA ، ثم انقل في قطرات صغيرة من LMA إلى شرائح داخل مخطط طلاء الأظافر. قلل من كمية RPT المنقولة إلى LMA حتى لا يتم تخفيف LMA. قبل أن يصلب LMA ، استخدم دافع الأجنة لتوجيه ، مع التأكد من أن كل مركب مع موقع إدخال الإبرة المقصود إلى اليمين ، وجميع محاذاة عموديا (الشكل 2B) ؛ اسمح للأغاروز بالتثبيت الكامل (~ 5 دقائق) قبل المتابعة.
ملاحظة: نظرا لأنه يمكن أخذ العديد من الخلايا من كل متبرع ، فمن الأفضل تركيب 2-4 مضيفة مع متبرع واحد على كل شريحة. - باستخدام مشرط ، قم بقطع شريحة عمودية مستقيمة من خلال جميع قطرات الأغاروز على يمين المركبة (الشكل 2 ج). إزالة agarose فضفاضة من الشريحة مع مناديل المختبر.
- باستخدام مشرط ، اقطع أسافين من الأغاروز لفضح موقع إدخال الإبرة (الشكل 2 ج). إزالة agarose فضفاضة من الشريحة مع مناديل المختبر.
- ضع RPT على الشريحة حتى تغمر قطرات الأغاروز بالكامل (الشكل 2 د).
- قم بتركيب الشريحة المعدة على مجهر الزرع. ضع المتبرع في بؤرة التركيز تحت هدف 40x. للقيام بذلك ، قم بخفض الهدف حتى يكسر سطح الوسائط ، ثم ارفع الهدف إلى المستوى البؤري المطلوب.
ملاحظة: يجب الحفاظ على ملامسة السائل بالهدف حتى اكتمال عملية الزرع (الشكل 3C). - التركيز على خلية (خلايا) المانحين ذات العلامات الفلورية ذات الأهمية ؛ بعد ذلك ، حرك المرحلة إلى اليسار استعدادا لتحديد موقع إبرة الزرع.
ملاحظة: في هذه المرحلة ، لا تقم بضبط المجهر على المحاور Y أو Z ، للتأكد من أنه يمكنك بسهولة إعادة العثور على المتبرع في القسم 5.
5. تحضير إبرة الزرع.
- أدخل ماصة صغيرة في مجتذب الماصة الدقيقة واسحب إبرة الحقن المجهري.
ملاحظة: يجب أن يكون شكل الإبرة مشابها لتلك المستخدمة في حقن جنين الزرد في مرحلة 1 خلية أو لقط التصحيح. نستخدم مجتذب ماصة صغيرة مع البرنامج التالي: الضغط = 500 ، الحرارة = المنحدر + 80 ، السحب = 90 ، السرعة = 70 ، الوقت = 250 (انظر جدول المواد) ، على الرغم من أن الإعدادات الصحيحة لكل مجتذب من المحتمل أن تحتاج إلى تحديد تجريبي. - قم بمحاذاة طرف الإبرة مع أقسام ميكرومتر المرحلة تحت نطاق تشريح. باستخدام الميكرومتر كدليل قياس ، استخدم زوجا حادا من الملقط لكسر الإبرة إلى حجم تجويف أكبر قليلا من قطر الخلايا ذات الأهمية (الشكل 3 أ). تأكد من أن الكسر نظيف قدر الإمكان ، حيث يمكن أن تساهم الحواف الخشنة في انسداد الإبرة. ملاحظة: بالنسبة للخلايا العصبية الحركية المبهمة (قطرها 5-7 ميكرومتر) ، يجب كسر الإبر إلى قطر داخلي يبلغ 10 ميكرومتر ، وهو ما يتوافق مع قطر خارجي يبلغ 20 ميكرومتر. إذا لزم الأمر ، يمكن تحسين حجم و / أو شكل و / أو زاوية طرف الإبرة باستخدام microforge أو microgrinder36.
- باستخدام حقنة سعة 50 مل مملوءة بزيت معدني خفيف ومجهزة بحشو ماصة ، املأ الإبرة بالكامل بالزيت المعدني (الشكل 3 ب). تأكد من عدم وجود فقاعات هواء. ضع الإبرة المملوءة جانبا حتى تصبح جاهزة للتركيب.
ملاحظة: لضمان عدم وجود فقاعات هواء ، أدخل حشو الماصة بالكامل في الإبرة وحرر الزيت أثناء سحب الحشو ببطء من الإبرة. - على جهاز الزرع ، أدر المحبس ثلاثي الاتجاهات بحيث يواجه ذراعه الطويل مضخة الحقن الدقيقة واضغط على مكبس حقنة الخزان لطرد جميع فقاعات الهواء من الخط الهيدروليكي. حافظ على الضغط الخفيف على المكبس (لمنع ارتجاع الهواء إلى الخط) وأدر المحبس ثلاثي الاتجاهات بحيث يواجه ذراعه الطويل حقنة الخزان.
- أدخل الإبرة في الحامل ، مع الحرص على عدم إدخال أي فقاعات هواء. اضبط زاوية الإبرة بحيث تواجه اليسار مباشرة بزاوية 10-15 درجة من الأفقي (الشكل 3C).
- استخدم المعالجات الدقيقة الخشنة والدقيقة لمناورة طرف الإبرة تحت هدف المجهر والتركيز عليها (الشكل 3 د).
ملاحظة: يمكن إجراء الموضع الخشن للإبرة في المستويين X و Y عن طريق المراقبة المباشرة للمنطقة الموجودة أسفل الهدف أثناء مناورة الإبرة ، حيث ستعكس الإبرة شعاع الضوء المرسل عند وضعه تحت الهدف. يمكن بعد ذلك استخدام عدسات المجهر لتحديد المواقع بدقة. لا تقم بضبط موضع مرحلة المجهر أو التركيز أثناء هذه الخطوة. استخدم المعالجات الدقيقة لإحضار طرف الإبرة إلى الموضع البؤري الحالي. - إذا كان السائل يتدفق داخل أو خارج طرف الإبرة ، فاضبط الضغط باستخدام مضخة المحقنة حتى يتم ملاحظة هلالة مستقرة بين الزيت المعدني ومحلول رينغر (الشكل 3 د).
ملاحظة: إذا بقيت فقاعة زيت عند طرف الإبرة بعد التثبيت ، فيمكن إزالتها باستخدام ضبط المستوى X على جهاز التحكم الدقيق الخشن لتحريك الإبرة إلى اليمين حتى يتم سحب طرفها من RPT ، ثم العودة إلى اليسار حتى يتم إعادة وضعها تحت الهدف.
6. الزرع
ملاحظة: يجب أن تتم جميع حركات الإبرة باستخدام المعالج الدقيق الدقيق لهذا القسم.
- حرك المسرح إلى اليمين حتى يتم إعادة المتبرع إلى العرض ، مع توخي الحذر لتجنب الاختراق العرضي بالإبرة.
- أعد التركيز وركز على الخلايا المراد زرعها وقم بمحاذاة الإبرة مع الخلايا الموجودة خارج مباشرة (الشكل 4 أ).
ملاحظة: قد تحتاج إلى التبديل بين برايتفيلد والتألق في كثير من الأحيان لضمان المحاذاة المناسبة. يمكن أن يساعد استخدام مرشح الكثافة المحايدة في تصور كليهما في وقت واحد. - أدخل الإبرة في المانح.
ملاحظة: يمكن أن تساعد حركات الدخول والخروج المتكررة بالإبرة في اختراق الجلد. - أعد تثبيت الغضروف المفصلي الزيتي في طرف الإبرة على الفور باستخدام مضخة الحقن المجهرية ، كما هو موضح في الخطوة 5.7.
- ضع طرف الإبرة على الخلايا ذات الأهمية وقم بتطبيق شفط لطيف باستخدام مضخة الحقن الدقيقة (الشكل 4 ب).
ملاحظة: يمكن أن تساعد حركات الدخول والخروج اللطيفة أثناء الشفط على تخفيف الخلايا. - عندما يتم تناول عدد كاف من الخلايا ، قم بإزالة الإبرة من المتبرع وأعد تثبيت الغضروف المفصلي الزيتي في طرف الإبرة على الفور باستخدام مضخة الحقن المجهرية.
- احرص على تجنب ملامسة أو الأغاروز بالإبرة ، قم بتغيير موضع المسرح لإبراز أول مضيف.
- توسيط وتركيز المنطقة التي سيتم وضع الخلايا فيها ومحاذاة الإبرة مع هذه المنطقة خارج مباشرة (الشكل 4C).
- أدخل الإبرة في المضيف وأعد تثبيت الغضروف المفصلي للزيت على الفور في طرف الإبرة باستخدام مضخة الحقن الدقيقة.
- ضع طرف الإبرة في موقع الترسيب واضغط برفق باستخدام مضخة الحقن الدقيقة حتى يتم إطلاق العدد الصحيح من خلايا المتبرع من الإبرة (الشكل 4 د).
ملاحظة: إذا تم تمييز الخلايا المانحة والمضيفة بفلوروفورات مختلفة ، فإن المرشح متعدد النطاقات للسماح بالتصور المتزامن يمكن أن يكون مفيدا جدا في هذه المرحلة. - قم بإزالة الإبرة من المضيف وأعد تثبيت الغضروف المفصلي الزيتي على الفور في طرف الإبرة باستخدام مضخة الحقن الدقيقة.
- كرر الخطوات 6.7-6.11 لكافة المضيفين المتبقين.
7. استعادة المضيفة
- ارفع هدف 40x واستخدم المناور الدقيق الخشن لمناورة الإبرة مرة أخرى إلى وضع التحميل.
ملاحظة: يمكن إعادة استخدام الإبرة لشرائح متعددة. - قم بإزالة الشريحة من مجهر الزرع وضعها تحت مجهر تشريح.
- قم بفك المضيفة عن طريق إزالتها بعناية من قطرة LMA بالملقط. باستخدام ماصة باستور الزجاجية ، انقل المضيفة إلى طبق بمحلول رينجر الطازج مع البنسلين / الستربتومايسين. تأكد من أن تتعافى من التخدير وتحتفظ بها في حاضنة الأجنة حتى تصبح جاهزة للتصوير. القتل الرحيم للحيوانات المانحة وفقا للبروتوكولات المعتمدة.
ملاحظة: طريقتنا للقتل الرحيم هي غمر في حمام جليدي لمدة 1 ساعة على الأقل تليها الغمر في 500 ملغ / لتر هيبوكلوريت الصوديوم.
النتائج
تتم ملاحظة نتائج تجارب الزرع مباشرة من خلال تصور الخلايا المانحة ذات العلامات الفلورية في المضيفة في نقاط زمنية مناسبة بعد الزرع باستخدام مجهر مضان. هنا ، قمنا بزرع الخلايا العصبية المبهمة الأمامية الفردية عند 3 dpf. ثم تم تحضين المضيفة لمدة 12 أو 48 ساعة ، وتخديرها ، وتركيبها في LMA على غطاء زجاجي ، وتصويرها بمجهر متحد البؤر (الشكل 5). في 12 ساعة بعد الزرع (hpt) ، نلاحظ خلية عصبية من متبرع تم زرعها بنجاح (الشكل 5 أ). يمكننا تأكيد الموضع الصحيح للخلية ، لأنها تقع بين الخلايا العصبية المبهمة المضيفة في المنطقة الأمامية للنواة الحركية المبهمة المضيفة. تظهر الخلية أيضا سليمة وصحية ، كما يتضح من امتداد العديد من نتوءات الخلايا العصبية القصيرة (الشكل 5 أ). في 2 أيام بعد الزرع (dpt) ، يمكننا أن نؤكد مرة أخرى أن خلية عصبية واحدة قد تم زرعها بنجاح في الموضع الصحيح للنواة المضيفة (الشكل 5B). في هذه المرحلة ، نلاحظ أن الخلية العصبية قد مددت محورا عصبيا جديدا إلى قوس البلعوم الرابع (الشكل 5B). تكشف الملاحظة المباشرة أيضا متى فشل الإجراء. في هذا المثال ، نلاحظ مضيف 2 dpt لا توجد فيه خلية عصبية مانحة. بدلا من ذلك ، تظهر بقعة خضراء صغيرة ، من المحتمل أن تكون جزءا من خلية عصبية متبرع ماتت بعد الزرع ، (الشكل 5C). على الرغم من أن معدلات نجاح الزرع ستختلف بناء على تجربة المستخدم وعدد الخلايا المزروعة ونوعها ، إلا أننا نشهد معدل نجاح (يعرف بأنه وجود خلية عصبية باقية قامت بتمديد محور عصبي في المضيف عند 2-3 dpt) بنسبة 66٪ (n = 453 عملية زرع) لعمليات زرع الخلايا العصبية الحركية المبهمة التي يتم إجراؤها عند 3-4 dpf33.
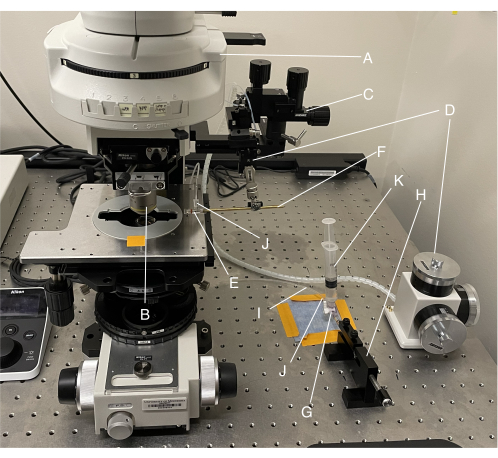
الشكل 1: نظرة عامة على جهاز الزرع. (أ) مجهر مضان منتصب؛ (ب) هدف غمس الماء 40 ضعفا؛ (ج) مناور دقيق خشن ؛ (د) مناور دقيق دقيق؛ (ه) حامل الأقطاب الكهربائية الدقيقة؛ (F) مقبض القطب ؛ (ز) محبس ثلاثي الاتجاهات؛ (ح) مضخة الحقن المجهرية؛ (ط) أنابيب البولي إيثيلين؛ (ي) محولات الكروماتوغرافيا؛ (ك) حقنة خزان سعة 10 مل. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
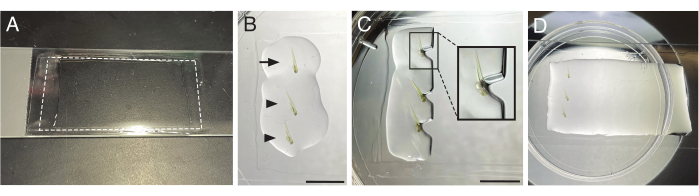
الشكل 2: تركيب للزراعة. (أ) شريحة زجاجية بلوري مقاس 3 بوصات × 1 بوصة مع طلاء أظافر شفاف مطبق في مخطط مستطيل (خط متقطع). (ب) المانحة (السهم) المضيفة (رأس السهم) المثبتة في قطرات من الأغاروز ، محاذاة رأسيا مع موقع هدف الزرع (الدماغ الخلفي) الموجه نحو اليمين. (ج) الأغاروز مع الحافة اليمنى والأوتاد المقطوعة لكشف الموقع المستهدف للزرع. أقحم: تكبير المنطقة المحاصرة. (د) شريحة زرع مغمورة بمحلول رينغر مع البنسلين والستربتومايسين والتريكائين. قضبان المقياس = 5 مم. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
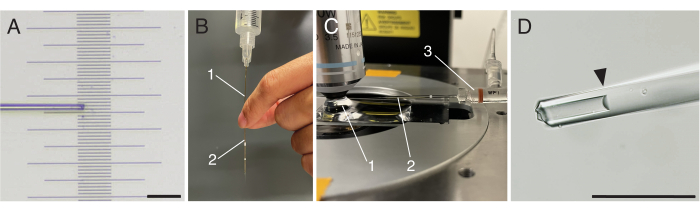
الشكل 3: تحضير إبرة الزرع. أ: إبرة زرع مكسورة فوق ميكرومتر مرحلة. (ب) حشو ماصة (1) يتم إدخاله في إبرة الزرع (2) لملء الإبرة بالزيت المعدني. (ج) إعداد شريحة الزرع والإبرة في مكانها على مجهر الزرع. 1: الغضروف المفصلي المائي بين هدف الغمس 40x والشريحة المغمورة 2: إبرة الزرع 3: حامل القطب الكهربائي. (د) طرف إبرة زرع مكسورة مع هلالة زيتية مستقرة (رأس سهم) ينظر إليها من خلال مجهر الزرع عند تكبير 40x. قضبان المقياس = 100 ميكرومتر الرجاء النقر هنا لعرض نسخة أكبر من هذا الشكل.
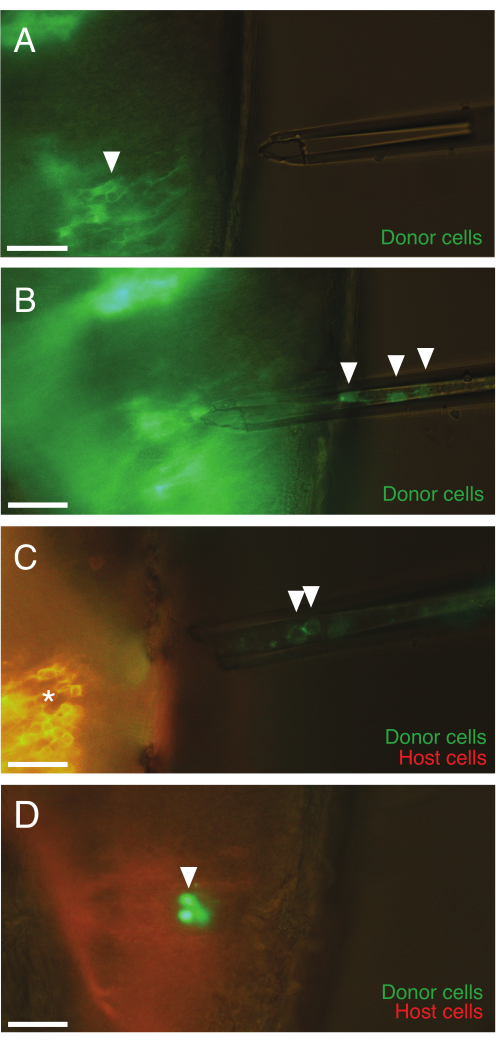
الشكل 4: عملية الزرع تحت المجهر. (أ) إبرة موضوعة خارج المتبرع ، تستهدف الخلايا العصبية الحركية المبهمة (خضراء ، رأس سهم). ب: إبرة موضوعة داخل المتبرع بعد تناول الخلايا العصبية المانحة ذات العلامات الفلورية (رؤوس الأسهم). (ج) إبرة تحتوي على العديد من الخلايا العصبية المانحة (رؤوس الأسهم) الموضوعة خارج المضيف ، وتستهدف الخلايا العصبية الحركية المبهمة المضيفة الأمامية (حمراء ، علامة نجمية). (د) المضيف بعد الزرع مع سحب الإبرة. تم طرد مجموعة من الخلايا العصبية المانحة المزروعة التي تعبر عن GFP (رأس السهم) إلى المضيف. أشرطة المقياس = 30 ميكرومتر يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
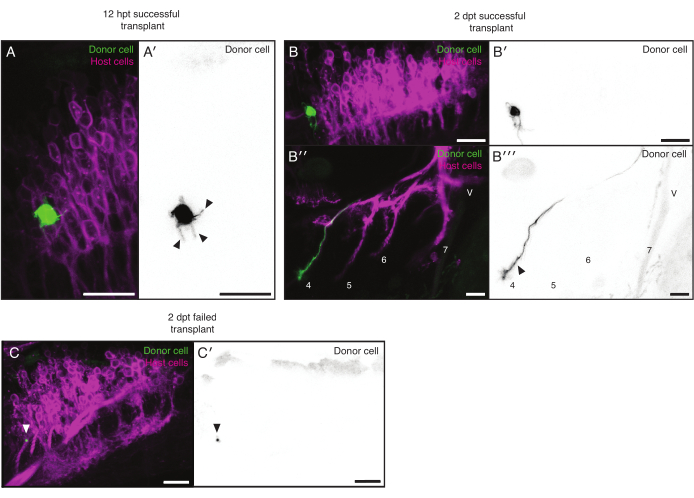
الشكل 5: النتائج التمثيلية. (أ، ب) عمليات زرع ناجحة. أ: المنطقة الأمامية لنواة حركية مبهمة مضيفة بقوة 12 hpt (أرجواني) تحتوي على خلية عصبية مانحة (أخضر، سوداء في A'). قامت الخلايا العصبية المانحة بتمديد العديد من الخلايا العصبية (الأسهم في A'). (ب) النواة الحركية المبهمة (B-B') والفروع المحورية البلعومية (B''-B''، الفروع المحورية الموسومة) لمضيف 2 dpt (أرجواني) يحتوي على خلية عصبية مانحة (أخضر، أسود في B'، B''). مددت الخلية العصبية المانحة محورا عصبيا جديدا إلى الفرع 4 (رؤوس الأسهم). الشكل 5 أ ، ب يمثلان مختلفة. ج: عملية زرع غير ناجحة. النواة الحركية المبهمة لمضيف 2 dpt (أرجواني). لا توجد خلايا عصبية مانحة. بدلا من ذلك ، توجد بقعة صغيرة (خضراء ، سوداء في C') ، من المحتمل أن تمثل جزءا من خلية عصبية متبرع ميت (رأس سهم). قضبان المقياس = 20 ميكرومتر. الاختصارات: dpt = أيام بعد الزرع ؛ HPT = ساعات بعد الزرع. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
المناقشة
اعتمدت البيولوجيا التنموية والتجديدية لأكثر من قرن على تجارب الزرع لفحص مبادئ إشارات الخلية وتحديد مصير الخلية. يمثل نموذج الزرد بالفعل اندماجا قويا للنهج الجينية وزراعة الأعضاء. يعد الزرع في مرحلتي البلاستولا والمعدة لتوليد الفسيفساء أمرا شائعا ولكنه محدود في أنواع الأسئلة التي يمكن معالجتها. الزرع في مرحلة لاحقة أمر نادر الحدوث ، على الرغم من أن طرق زرع الخلايا العصبية الحركية الشوكية الجنينية وخلايا العقدة الشبكية عند 16-18 hpf و 30-33 hpf ، على التوالي ، تم الإبلاغ عن26،27،28. وبالاستلهام من هذه الجهود السابقة، يعزز هذا العمل قوة زراعة أسماك الزرد من خلال وصف نهج قابل للتطبيق على المراحل الجنينية واليرقية المتأخرة، مما يفتح الباب لاستخدامه في دراسات التجديد، ويدمج الأساليب الفلورية المعدلة وراثيا الحديثة لتعزيز وضع العلامات والنقل والتتبع طويل الأجل للخلايا.
يقدم هذا البروتوكول فرصا جديدة لزرع خلايا من العديد من مراحل التمايز والأعمار المختلفة ، بما في ذلك في سياق التجدد. على سبيل المثال ، تم استخدام زرع الخلايا العصبية المتمايزة لدراسة كيفية تأثير ديناميكيات الإشارات على الهوية العصبية عن طريق تغيير السياقات المكانية والزمانية التي تتطور فيها الخلايا العصبية32 ؛ لفحص توقيت تحديد الخلايا العصبية26 ؛ كوسيلة لإصابة المحاور العصبية وتتبع إعادة نموها بدقةخلية واحدة 33 ؛ لفحص الدور المستقل للخلية لمستقبل أثناء تجديد المحور العصبي عن طريق عمليات زرع من النوع المتحور إلى البري33 ؛ ودراسة دور الذاكرة المستهدفة في التوجيه العصبي التجديدي33. بينما ركزنا حتى الآن على زرع الخلايا العصبية ، فإننا لسنا على دراية بأي خاصية للخلايا العصبية تجعلها مناسبة بشكل فريد لهذا النهج. بدلا من ذلك ، نعتقد أن هذا النهج ينطبق على العديد من أنواع الخلايا. نأمل ونتوقع أن يجد الباحثون طرقا مبتكرة لدراسة ديناميكيات التطوير والتجديد في العديد من السياقات باستخدام هذه التقنية.
تشمل الاعتبارات الحاسمة في هذا البروتوكول اختيار ملصقات الخلايا ، وملاءمة الخلايا للزراعة ، وإمكانية الوصول إلى الأنسجة. يعد ملصق الفلورسنت اللامع والمستقر والدائم للخلايا المانحة أمرا مهما لتسهيل كل من عملية الزرع والتتبع اللاحق. يمكن استخدام كل من الأصباغ المحقونة والجينات المحورة ، على الرغم من أن جينات التحوير يمكن أن تكون أكثر ديمومة وأكثر تحديدا للخلايا محل الاهتمام. تعمل مقاومة التبييض الضوئي أيضا على إطالة الوقت الذي يمكن للمرء أن يستغرقه في إجراء عملية الزرع. يجب أن تكون الخلايا المانحة ملتصقة بشكل فضفاض بما فيه الكفاية وذات شكل مناسب ليتم سحبها إلى الإبرة من الأنسجة المحيطة / المصفوفة خارج الخلية دون ضرر مفرط. تشمل التعديلات لأنواع الخلايا المختلفة ضبط حجم تجويف الإبرة ، والذي يجب أن يكون أكبر قليلا من قطر الخلية محل الاهتمام ؛ توجيه بشكل صحيح أثناء التركيب لتسهيل الوصول إلى الخلايا ذات الاهتمام ؛ وتحسين مستوى الشفط أو الاضطراب الجسدي المطلوب لتخفيف الخلايا وسحبها. مع تقدم في العمر ، قد يتعذر الوصول إلى بعض الأنسجة بصريا و / أو جسديا ، على الرغم من أننا لسنا على علم بأي حدود عمرية محددة. على سبيل المثال ، من المحتمل أن تحد الجمجمة في النهاية من الوصول إلى الخلايا العصبية. قد تشمل التعديلات استخدام غير المصطبغة لتصور الأنسجة الداخلية بسهولة أكبر ، أو إجراء شقوق صغيرة أولية ، أو تعديلات على سمك الأنبوب الشعري الدقيق ، أو شكل الإبرة المسحوبة لتسهيل دخول الإبرة.
تشمل قيود هذا البروتوكول الخلايا من أنواع وأعمار معينة غير قابلة للزرع ، كما هو موضح أعلاه ، وصعوبة الحفاظ على الهياكل على مستوى الأنسجة أثناء الزرع. نظرا لأن هذا الإجراء يتطلب فصل الخلايا الفردية عن محيطها أثناء الإزالة ، فستفقد تفاعلات الخلايا الخلوية والهياكل ذات الترتيب الأعلى. قد يستجيب الجهاز المناعي الفطري ، الذي يصبح وظيفيا أثناء التطور الجنيني ، لتلف الأنسجة أو وجود خلايا ميتة وحطام في موقع الزرع ، مما قد يؤثر على بقاء خلايا المتبرع37,38. في مراحل لاحقة ، قد يتم أيضا رفض خلايا المتبرع من قبل جهاز المناعة التكيفي ، والذي يصبح وظيفيا في 3-6 أسابيع بعد الإخصاب39,40. يمكن تجنب هذه المشكلة عن طريق الزرع في مضيفات تفتقر إلى المناعة التكيفية أو الفطرية41،42،43،44.
تشمل الصعوبات المحتملة في البروتوكول التي قد تتطلب استكشاف الأخطاء وإصلاحها ما يلي: أولا ، يجب أن تتحرك المواد الموجودة داخل الإبرة بطريقة سلسة وسريعة الاستجابة أثناء الشفط والضغط. من المحتمل أن تكون الحركة الوثبة وغير المتسقة ناتجة عن وجود فقاعات هواء في الخط الهيدروليكي أو انسداد جزئي في الإبرة ؛ لذلك ، يجب توخي الحذر لإزالة جميع فقاعات الهواء من الإبرة والخط الهيدروليكي أثناء الإعداد. إذا تم العثور على فقاعات هواء ، فأعد الإبرة إلى وضع التحميل باستخدام جهاز التحكم الدقيق الخشن ، وقم بإزالة الإبرة من الحامل ، واغسل الإبرة وخط بالزيت المعدني قبل إعادة التجميع. يمكن التخفيف من انسداد الإبرة عن طريق تجنب فواصل الإبر الخشنة. يمكن حل السدادات في بعض الأحيان عن طريق طرد الزيت المعدني من طرف الإبرة لدفع السدادة أو عن طريق التراجع الكامل ثم إعادة إدخال الإبرة في RPT ؛ خلاف ذلك ، يجب استخدام إبرة جديدة. ثانيا ، قد تكون هناك صعوبة في تخفيف الخلايا أثناء الإزالة. يمكن أن يساعد كسر طرف الإبرة بزاوية للحصول على شكل مشطوف ، وتحريك الإبرة ذهابا وإيابا أثناء الشفط ، وضبط قوة الشفط في تخفيف الخلايا للانفصال عن الأنسجة. يمكن أيضا استخدام المطحنة الدقيقة لإعداد الإبر المشطوفة بحجم فتح محدد وزاوية36. أخيرا ، قد يكون هناك تلف للخلايا أثناء الإزالة. قد تفقد الخلايا التالفة بشدة شكلها المحدد وتظهر على شكل شظايا صغيرة أو نقاط فلورية غير متبلورة في إبرة الحقن. قد يكون فشل الخلايا في البقاء على قيد الحياة بعد الزرع أيضا مؤشرا على الضرر ويمكن فحصه بسهولة من خلال عدم وجود خلايا معلمة بالفلورسنت في المضيف. يمكن أن يشمل استكشاف الأخطاء وإصلاحها لتلف الخلايا المتكرر زيادة حجم تجويف الإبرة والحد من كمية الشفط المطبقة لتقليل قوة القص. قد تؤدي الإبرة المسدودة جزئيا أيضا إلى زيادة قوى القص ، مما يؤدي إلى تلفها.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للكشف عنه.
شكر وتقدير
نشكر سيسيليا موينز على التدريب على زراعة الزرد. مارك تاي لرعاية الأسماك الممتازة ؛ وإيما كارلسون للحصول على تعليقات على المخطوطة. تم دعم هذا العمل من خلال منحة المعاهد الوطنية للصحة NS121595 إلى A.J.I.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 10 مل "حقنة الخزان" | فيشر ساينتفيك | 14-955-459 | |
| 150 مل مرشح فراغ يمكن التخلص منه ، .2 & مايكرو ؛ م ، PES | Corning | 431153 | |
| كتلة تسخين 20 × 12 مم | Corning | 480122 | |
| محبس ثلاثي الاتجاهات | Braun Medical Inc. | 455991 | |
| 3 × 1 شريحة زجاجية | VWR | 48312-004 | |
| 40x هدف غمس الماء | نيكون | MRD07420 | |
| كلوريد الكالسيوم ثنائي هيدرات | Sigma-Aldrich | C3306 | |
| مناور خشن | Narishige | MN-4 | |
| مضخة حقنة دقيقة مخصصة | جامعة أوريغون | N / A | تم تصنيعها بواسطة ورشة ماكينات جامعة أوريغون (tsa.uoregon@gmail.com). البديل المتاح تجاريا مذكور أدناه. |
| Dumont # 5 Fulps | Fine Science | Tools 1129500 | |
| Eclipse FN1 "مجهر الزرع" | مقبض القطب الكهربائي من نيكون | N / A | |
| World Precision Instruments | 5444 | ||
| شفرة جراحية معقمة للريشة ، # 11 | VWR | 21899-530 | |
| معالج دقيق دقيق ، زيت هيدروليكي ثلاثي المحاور ؛ | Narishige | MMO-203 | |
| HEPES درجة الحموضة 7.2 | Sigma-Aldrich | H3375-100G | |
| عالية الدقة # 3 نمط مقبض مشرط | فيشر Scientific | 12-000-163 | |
| Kimble ماصة باستور البورسليكات التي يمكن التخلص منها ، طرف عريض ، 5.75 في | DWK Life Sciences | 63A53WT | |
| KIMBLE محول كروماتوغرافيا ؛ | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| الزيوت المعدنية الخفيفة | Sigma-Aldrich | M3516-1L | |
| LSE سخان حمام جاف رقمي ، 1 كتلة ، 120 فولت | Corning | 6875SB | |
| مضخة الحقن الدقيقة اليدوية | World Precision | Instruments MMP | بديل تجاري لمضخة الحقنة الدقيقة المخصصة |
| حامل القطب الكهربائي | الدقيق العالمي للأدوات | الدقيقة MPH310 | |
| MicroFil Pipette Filler | World Precision | Instruments MF28G67-5 | |
| طلاء الأظافر | الإلكترون علوم التنظير | 72180 | |
| مياه خالية من النوكلياز | VWR | 82007-334 | |
| P-97 مشتعل / براون نوع مجتذب | مجتذب | أدواتP-97 | |
| البنسلين الستربتومايسين | سيجما ألدريتش | p4458-100ML | 5,000 وحدة البنسلين و 5 مجم الستربتومايسين / |
| مل مضخة ماصة 10 مل | بيل آرت | 37898-0000 | |
| كلوريد البوتاسيوم | سيجما-ألدريتش | P3911 | |
| المهنية سوبر غراء | لوكتايت | LOC1365882 | |
| أنابيب | اختبار البوليسترين المستديرة القاعفالكون | 352054 | |
| كلوريد الصوديوم | سيجما ألدريتش | S9888 | |
| المرحلة ميكرومتر | ميجي تكنو أمريكا | MA285 | |
| محاقن بدون إبرة ، 50 مل | BD 309635 | ||
| تريكايين ميثانوسلفونات | سيندل الولايات المتحدة الأمريكية | SYNCMGAUS03 | |
| Trilene XL صب السلس خط الصيد | Berkley | XLFS6-15 | |
| الأنابيب ، البولي إيثيلين رقم 205 | BD 427445 | ||
| الطبية UltraPure Low Melting Point Agarose | Invitrogen | 16520050 | |
| Wiretrol II الماصات الدقيقة المعايرة | Drummond | 50002010 |
المراجع
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
إعادة الطباعة والأذونات
