تقدم هذه المقالة نموذجا للزراعة المشتركة لخلايا ثيكا البقرية والحبيبية. هذه الطريقة لديها القدرة على أن تكون بمثابة أساس موثوق به للتحليلات التي تركز على دراسة الاتصال paracrine ونقل الركيزة بين الخلايا الجسدية داخل المسام.
مقالة منهجية
نظام ثقافة مشتركة معدل لفهم تفاعلات الخلايا الحبيبية والثيكا في المبيض البقري
في هذه المقالة
ملخص
الملخص
إن الزراعة المشتركة الموثوقة للحبيبات (GCs) وخلايا theca (TCs) لديها القدرة على تسهيل فهم أكثر شمولا للتفاعلات ومسارات الإشارات وتبادل الركيزة بين كلتا حجري الخلية في بصيلات المبيض البقري. باستخدام إدخالات زراعة الخلايا المتاحة تجاريا ، تم إنشاء نموذج استزراع مشترك قابل للتكرار من GCs و TCs البقرية. لوحظ أن خلايا ثيكا والحبيبات الأولية تتطلب وقتا أطول بكثير للالتصاق بغشاء الإدخال مقارنة بخطوط الخلايا. في البداية ، تم زرع TCs على غشاء الإدخال المقلوب ، مع وجود أنبوب مقطوع يعمل كحاوية تلقيح لمنع التسرب المتوسط. بعد فترة حضانة استمرت 72 ساعة ، تم قلب الإدخال ، مما سمح بزراعة GCs على الجانب الآخر من الغشاء. ثم خضع هذا الاستزراع المشترك لمدة 6 أيام إضافية من الحضانة عند 37 درجة مئوية و 5٪ ثاني أكسيد الكربون2 ، مع تبادل الوسائط كل يومين. أشار التعبير عن جينات العلامة إلى أنماط خاصة بنوع الخلية ، حيث CYP17A1 وفيرة للغاية في TCs ولا يتم التعبير عنها في GCs. على العكس من ذلك ، أظهر CYP19A1 مستويات عالية في GCs ومستويات منخفضة فقط في TCs. دعم تحليل الهرمونات وجود نظام الاستزراع الفسيولوجي المشترك ، كما يتضح من تخليق الاستراديول. يدعم نموذج الزراعة المشتركة المعدل هذا الدراسات القابلة للتكرار لإشارات paracrine ونقل الركيزة بين الخلايا الجسدية للجريب.
المقدمة
أثناء تكوين الجريبات ، تؤدي الزيادة في هرمون اللوتين (LH) إلى سلسلة من التغيرات الفسيولوجية في المبيض ، مما يؤدي في النهاية إلى إطلاق بويضة ناضجة أثناء الإباضة1،2. يتم تنظيم هذه العملية بإحكام بواسطة الخلايا الجسدية المسامية ، والتي توفر الدعم الأساسي لنضوج البويضات وتضمن وظيفة الإباضة المناسبة3. تتكون المسام من نوعين من الخلايا الجسدية الستيرويدية ، طبقة داخلية من الخلايا الحبيبية (GCs) وطبقة خارجية من خلايا theca (TCs). من بين هؤلاء ، تخضع GCs للتغيرات المورفولوجية والوظيفية الأكثر وضوحا بعد زيادة LH ، مما يسلط الضوء على دورها الحاسم في تنظيم المراحل النهائية من تطور البصيلات4. وبالتالي ، فإن GCs ذات أهمية كبيرة في تحليل العوامل التي قد تؤثر على تكوين الجريبات والإباضة واللوتين.
تم إنشاء نموذج زراعة الخلايا من GCs البقرية التي تحاكي حالة نشطة استراديولسابقا 5،6،7،8،9،10،11. يسمح نموذج الثقافة الخالي من المصل هذا بتحليل موثوق لفسيولوجيا GC وتحليلات المستجيب المحتملة في مسارات الإشارات ، وتنظيم الجينات ، وتخليق الهرمونات12،13،14. ومع ذلك ، فإن بنية المسام أكثر تعقيدا ، كما هو موضح في فرضية 2-cell-2-gonadotropin15. هذا يؤكد الاعتماد والطبيعة المترابطة لأنواع الخلايا في سياق تخليق الستيرويد الذي يتم تقسيمها بين الطبقتين.
وصف عدد من الدراسات نماذج الاستزراع TC التي تشبه أنظمة الاستزراع الأحادي GC التي تم إنشاؤها سابقا16،17،18. ومع ذلك ، تم الإبلاغ عن نظام زراعة مشترك لخلايا خنازير الخنازير ثيكا والحبيبية ، حيث يتم زراعة كلا مجموعتي الخلايا في طبق واحد بنسبة 4: 1 من GCs إلى TCs19،20،21. في هذا النموذج ، يمكن إظهار أن هناك نظاما وظيفيا وتفاعلا بين الخلايا الحبيبية والخلايا ، مما يكشف عن كمية أعلى من الاستراديول في نظام الزراعة المشتركة مقارنة بالزراعة الأحادية. ومع ذلك ، تجدر الإشارة إلى أن هذا النموذج غير قادر على تحليل التفاعل وتبادل الركيزة بشكل كاف بين الخلايا الحبيبية والخلايا ، حيث قد يتأثر كلا النوعين من الخلايا بشكل مختلف. لذلك ، فإن التحليل على المستويات الجزيئية ل GCs و TCs بشكل مستقل عن بعضها البعض يكاد يكون غير ممكن بدون إجراء فرز مفصل ، والذي قد يؤثر في حد ذاته على فسيولوجيا الخلية. علاوة على ذلك ، من المهم مراعاة أن هذا النموذج قد لا يكرر بدقة الموقف قبل زيادة الهرمون اللوتيني ، عندما يتم فصل GCs و TCs بواسطة غشاء قاعدي3. في الأبقار ، تم اقتراح نظام زراعة الخلايا القائم على الغشاء ، حيث يتم زراعة كلا النوعين من الخلايا على جانبي غشاء الكولاجين ، مما يعكس الوضع في الجسم الحي بشكل أكثر دقة22،23،24،25،26.
من خلال تكييف المفهوم الأولي للنظام القائم على الغشاء ، تهدف هذه الطريقة إلى إنشاء نموذج زراعة مشتركة ل GCs و TCs البقرية مع إدخالات زراعة الخلايا لتمكين الدراسات المستقبلية لإشارات paracrine بين كلتا حجيرات الخلية. تستخدم الطريقة المقدمة إدخالات زراعة الخلايا المعلقة المتوفرة تجاريا بدلا من نظام الغشاء المخصص ، مما يوفر مزايا مثل قابلية التكاثر العالية والجودة الموحدة وتحسين استقرار المنتج. يضمن هذا النهج الاتساق عبر التجارب ، مما يجعله أداة قيمة للباحثين الذين يدرسون تفاعلات الخلايا المسامي. يتضمن إجراء الاستزراع البذر الأولي لخلايا 1.7-1.8 × 10⁵ خلايا ثيكا على الجانب السفلي من الملحق ، تليها ما يقرب من 1.0 × 10⁵ خلايا حبيبية على السطح العلوي بعد الانعكاس وحضانة مسبقة لمدة 72 ساعة. يتم الحفاظ على الثقافات في وسط محدد في ظل ظروف قياسية (37 درجة مئوية ، 5٪ ثاني أكسيد الكربون2) مع تبادل الوسائط كل يومين. لتمكين تبادل paracrine عبر المقصورات ، تم استخدام إدخالات زراعة الخلايا 0.4 ميكرومتر المصنوعة من البوليستر ، مثل البولي إيثيلين تيريفثاليت (PET) ، (متوفرة تجاريا). تسمح أغشية حجم المسام هذا بانتشار الجزيئات الكبيرة القابلة للذوبان ، مثل الهرمونات وعوامل النمو والبروتينات ، مع منع هجرة الخلايا27،28.
من خلال تمكين الفصل المكاني مع الحفاظ على اتصال paracrine ، يوفر نظام الزراعة المشتركة هذا بيئة ذات صلة من الناحية الفسيولوجية للتحقيق في تفاعلات الخلايا الحبيبية ومسارات الإشارات وتبادل الركيزة. النموذج مناسب بشكل خاص للدراسات التي تتطلب ظروفا خاضعة للرقابة ، مثل تنظيم الهرمونات أو تحليل التعبير الجيني أو اختبار المخدرات. قد يجد الباحثون المهتمون بديناميكيات البصيلات أو فسيولوجيا التناسلية أو اضطرابات المبيض أن هذه الطريقة قابلة للتطبيق على دراساتهم. بالإضافة إلى ذلك ، يسمح استخدام الإدخالات القياسية بالتكيف السهل مع الاحتياجات التجريبية المختلفة ، بما في ذلك التعديلات في مدة الاستزراع أو أنواع الخلايا أو ظروف العلاج.
البروتوكول
تم الحصول على المبايض البقرية من مسلخ تجاري محلي. في هذا الإعداد التجريبي ، يتم تحضير المبايض في غضون ساعتين بعد الاستلام. لا يتطلب جمع المنتجات الثانوية للمسالخ موافقة أخلاقية وفقا للقانون الألماني.
ملاحظة: تم بالفعل وصف عزل وحفظ GCs البقرية وعرضها في تقرير الطريقةالسابق 6 ويمكن إجراؤها وفقا لذلك.
1. تحضير الكواشف والإعداد لتشريح بصيلات المبيض
- تحضير 1x PBS (درجة الحموضة 7.4) مكمل ب 100 وحدة دولية من البنسلين ، و 0.1 مجم / مل من الستربتومايسين ، و 0.5 ميكروغرام / مل من الأمفوتريسين لنقل المبايض. يمكن تخزين المحلول عند 4 درجات مئوية لمدة تصل إلى 4 أسابيع.
- قم بإعداد محلول الهضم الذي يحتوي على 10x من محلول هانكس من الملح المكملة ب 25 ملي مولار HEPES و 100 وحدة دولية من البنسلين و 0.1 مجم / مل من الستربتومايسين و 0.5 ميكروغرام / مل من الأمفوتريسين. يمكن تخزين محلول الهضم عند 4 درجات مئوية لمدة 2-3 أسابيع.
- املأ 1 مل من محلول الهضم في أنابيب سعة 1.5 مل لكل بصيلات تشريح مخطط لها وقم بتسخين المحلول مسبقا إلى 37 درجة مئوية.
- أضف 10 ميكرولتر من الكولاجيناز NB8 لتحقيق تركيز 0.1٪ من محلول الهضم قبل وقت قصير من التحضير.
- قم بإعداد الأطباق التالية لإجراءات التحضير والعزل والغسيل.
- أطباق زجاجية بقطر لا يقل عن 3 سم لوضع المبايض للتشريح.
- صفيحة من 6 آبار مع 1 مل 1x PBS (مكملة بالمضادات الحيوية) للغسيل.
- طبق مكون من 12 بئر يحتوي على حوالي 10 ميكرولتر من محلول الهضم.
- للحفظ بالتبريد ، قم بإعداد محلول تجميد يتكون من 80٪ مصل ربلة الساق الجنينية (FCS) و 20٪ DMSO.
ملاحظة: سيكون التركيز النهائي ل DMSO للحفظ بالتبريد 10٪.
2. تشريح البصيلات مع الهضم اللاحق لخلايا ثيكا البقرية
- قم بإجراء إجراءات هضم الخلايا وكذلك عمل زراعة الخلايا تحت مقعد التدفق الرقائقي.
- اغسل المبايض 2-3x في 1x PBS (مكمل بالمضادات الحيوية ، انظر الخطوة 1.1) لإزالة الدم والمخلفات الأخرى من السطح. ضعي المبايض في كوب ، واملأيه ب 1x PBS بحيث يتم تغطية المبايض ، وتخلص من المحلول بعد ذلك. كرر هذه الخطوة 3-4 مرات حتى يصبح المبيضان نظيفين.
- ضع مبيضا واحدا في طبق زجاجي واختر بصيلات من 5-11 مم ، مقاسة بمسطرة ، للتشريح.
- استنشق السائل المسامي بحقنة سعة 3 مل وإبرة 18 جرام عن طريق ثقب بصيلة واحدة محددة. تخلص من السائل المسامي.
- اقطع المسام بالمقص ، بدءا من النقطة التي تم فيها إدخال الإبرة أثناء الشفط. استخدم زوجا من المناظير للقطع الدقيق.
- استخدم الملقط في حافة القطع من البصيلات لإمساك الطبقة الأعمق ، theca interna.
- حاول تقشير theca interna من الجانب الداخلي لجدار المسام المفتوح.
ملاحظة: اعتمادا على عمر أو مرحلة المسام ، يمكن تقشير طبقة خلية theca بسهولة أكبر ، مما ينتج عنه طبقة ثيكا سليمة.
- ضع طبقة خلية theca في طبق مملوء ب 1x PBS (مكمل بالمضادات الحيوية ، انظر الخطوة 1.1.) لإزالة الخلايا الحبيبية المتبقية.
- اكشط الخلايا الحبيبية برفق من الجانب الداخلي للغشاء باستخدام مشرط. يجب أن تنفصل الخلايا بسهولة في مجموعات كبيرة.
- ضع طبقة خلية theca في طبق جديد مملوء ب 1x PBS لغسلها.
- اشطف الغشاء بعناية عن طريق تحريك 1x PBS الطازج لإزالة أي خلايا فضفاضة.
ملاحظة: من الخطوة التالية فصاعدا ، اعمل تحت صندوق التدفق الرقائقي.
- انقل theca interna إلى محلول الهضم المحضر للوحة المكونة من 12 بئرا (انظر الخطوتين 1.2 و 1.3.3) وقم بتقطيعه إلى قطع صغيرة ، يفترض أن يكون 1-3 مم ، باستخدام مشرط.
ملاحظة: يوصى بهضم خلايا ثيكا من بصيلات مختلفة بشكل مستقل لمنع انسداد الأنسجة من أصول مختلفة. - انقل مقتطفات theca إلى أنبوب تفاعل مجهز سعة 1.5 مل (انظر الخطوتين 1.2.1 و 1.2.2). احتضن الثيكا في حاضنة رج الترمس عند 800 دورة في الدقيقة عند 37 درجة مئوية لمدة 45-50 دقيقة.
- بعد الرج لمدة 30 دقيقة ، ابدأ في دوامة أنابيب التفاعل لمدة 3-5 ثوان ووضعها مرة أخرى في حاضنة الاهتزاز.
- كرر هذه الخطوة 3-4x في وقت الحضانة المتبقي.
- بعد الحضانة ، أعد تعليق الخلايا المهضومة باستخدام ماصة.
- تخلص من الأنسجة غير المهضومة عن طريق الترشيح باستخدام مصفاة الخلايا 100 ميكرومتر الموضوعة على أنبوب سعة 50 مل ، وتابع على الفور العد والحفاظ على الخلايا بالتبريد لإزالة وسط الهضم.
3. العد والحفاظ على TCs بالتبريد
- لحساب عدد الخلايا القابلة للحياة ، قم بإعداد أنبوب به 1.5 ميكرولتر من محلول تريبان الأزرق 0.25٪. ستبقى الخلايا الحية غير ملطخة ، بينما تظهر الخلايا الميتة باللون الأزرق بسبب وصول التربان الأزرق من خلال حواجز الخلايا المكسورة.
- أضف 15 ميكرولتر من معلق الخلية المهضوم إلى محلول التربان الأزرق واخلطه برفق.
- ضع 10 ميكرولتر من الخليط في غرفتي مقياس الكريات الدموية. احسب عدد الخلايا الحية (= عديمة اللون) في مربع واحد كبير لكل غرفة.
- حدد عدد الخلايا الحية بمتوسط مربعات الغرفة باتباع الإرشادات القياسية. لاحظ أن نسبة الخلايا الحية قد تختلف بين المبايض.
- قم بتجميد الأجزاء غير المهضومة من تعليق خلية theca (انظر الخطوة 2.9) للمقارنة المقصودة كعنصر تحكم غير مستزرع ولإجراء تقييم للتلوث المتبادل المحتمل مع GCs (كما هو موضح في الشكل 2).
- انقل الأنسجة غير المهضومة لكل تشريح داخلي متبقي في مصفاة الخلية 100 ميكرومتر (انظر الخطوة 2.10) إلى أنبوب مسمى.
- قم بتجميد الأنبوب بالصدمات في النيتروجين السائل قبل تخزينه عند -80 درجة مئوية.
- إجراء الحفظ بالتبريد لخلايا theca المعزولة من أجل تسهيل التخطيط المحسن لمزارع الخلايا ، مع إيلاء اهتمام خاص لعدد الخلايا المطلوبة.
- قم بالطرد المركزي لتعليق الخلية المهضومة عند 500 × جم لمدة 5 دقائق في درجة حرارة الغرفة (في المتوسط 20 درجة مئوية). تخلص من الطواقي.
- قم بإذابة حبيبات الخلية بعناية في 1 مل من 100٪ FCS. أضف 1 مل من وسائط التجميد (انظر الخطوة 1.4) إلى محلول الخلية. التركيز النهائي ل DMSO للحفظ بالتبريد هو 10٪. انقل الخليط إلى قوارير التبريد المحددة سعة 2 مل.
- ضع القوارير في جهاز مبرد لانخفاض درجة الحرارة بشكل متحكم فيه. في هذا الإعداد ، تم استخدام حاوية تجميد محددة ، والتي تضمن معدل تجميد يبلغ -1 درجة مئوية / دقيقة عند وضعها لمدة 4 ساعات على الأقل في -80 درجة مئوية. بعد ذلك ، يمكن تخزين القوارير في أنظمة تخزين النيتروجين السائل.
4. الاستعدادات لعمل زراعة الخلايا
- اقطع الغطاء عن أنبوب تفاعل 1.5 مل. بعد ذلك ، قم بقطع أنبوب التفاعل على بعد حوالي 1 سم من الفتحة بمساعدة مشرط (يفضل أن يكون دافئا) أو قاطع خرطوم مناسب. بعد ذلك ، قم بتعقيم الأنابيب والأغطية المقطوعة. قد تكون الأغطية مطلوبة للإجراءات اللاحقة لزراعة الخلايا (انظر الخطوة 5.5).
ملاحظة: تأكد من أن الأنابيب سعة 1.5 مل مناسبة بإحكام للملحق المختار. - تأكد من تغطية الحشوات ب 0.02٪ كولاجين R لمرفق GC و TC في المزرعة.
ملاحظة: قم بإجراء الطلاء تحت غطاء التدفق الصفحي المعقم.- استخدم الماء النقي (مناسب لزراعة الخلايا) لتحضير محلول كولاجين R بنسبة 0.02٪. قم بإعداد 80 ميكرولتر من هذا المحلول لكل إدخال مزرعة خلوية مطلوبة.
- ضع الملحق رأسا على عقب في غطاء طبق 24 بئر. أضف برفق 40 ميكرولتر من محلول الكولاجين R إلى غشاء الملحق ، مع التأكد من بقائه في مكانه. اترك محلول الكولاجين R ليجف لمدة 4-5 ساعات تحت غطاء التدفق الرقائقي.
- اقلب الملحق وقم بتعليقه في آبار اللوحة المكونة من 24 بئرا لتغطية الجانب الثاني مرة أخرى ب 40 ميكرولتر من محلول الكولاجين R. دع المحلول يجف مرة أخرى لمدة 4-5 ساعات.
- قم بإشعاع الحشوات بضوء الأشعة فوق البنفسجية لمدة 10-15 دقيقة لتقليل التلوث.
- يجب تخزين الإدخالات داخل الطبق المكون من 24 بئرا (ويفضل أن يكون ذلك في كيس التوصيل المعقم) وفي الثلاجة عند 4 درجات مئوية ويمكن استخدامها لمدة تصل إلى 4 أسابيع.
- إعداد وسائل الإعلام8،10 على النحو التالي:
ملاحظة: قم بإجراء تحضير الوسائط تحت غطاء تدفق رقائقي معقم.- استكمل الوسط الأساسي α الصغرى (α-MEM) ب 2 ملي ل-جلوتامين ، 0.084٪ بيكربونات الصوديوم ، 0.1٪ BSA ، 20 ملي HEPES ، 4 نانوغرام / مل سيلينيت الصوديوم ، 5 ميكروغرام / مل ترانسفيرين ، 10 نانوغرام / مل أنسولين ، و 1 ملي مولار من الأحماض الأمينية غير الأساسية.
ملاحظة: لضمان الاتساق ، يوصى بإعداد وسيط كاف للتجربة بأكملها مسبقا. يمكن تخزين الوسط المحضر عند 4 درجات مئوية. بالنسبة للإعداد الموصوف ، استخدم 750 ميكرولتر لكل مزرعة خلية جيدا. - علاوة على ذلك ، أضف 100 وحدة دولية من البنسلين ، و 0.1 مجم / مل من الستربتومايسين ، و 0.5 ميكروغرام / مل من الأمفوتريسين إلى الوسائط المحضرة.
- قم بتسخين الوسائط مسبقا عند 37 درجة مئوية في حمام مائي.
ملاحظة: بعد الاحترار المسبق للوسط ، تكون المضادات الحيوية مستقرة لمدة 48 ساعة تقريبا. لذلك ، قم بتخصيص الكمية المطلوبة فقط من الوسائط للاحترار. - بالإضافة إلى ذلك ، قم بتكملة α-MEM ب 20 نانوغرام / مل من هرمون تحفيز المسام (FSH) ، و 50 نانوغرام / مل من R3 IGF-1 ، و 2 ميكرومتر أندروستينيديون لبيئة الخلية الفسيولوجية7،8،10،11.
ملاحظة: أضف هذه المكونات قبل وقت قصير من بداية الثقافة أو التبادل الإعلامي. من أجل منع نشاط مخترق ، من الضروري تجنب دورات التجميد والذوبان المتكررة لحلول مخزون FSH و IGF-1.
- استكمل الوسط الأساسي α الصغرى (α-MEM) ب 2 ملي ل-جلوتامين ، 0.084٪ بيكربونات الصوديوم ، 0.1٪ BSA ، 20 ملي HEPES ، 4 نانوغرام / مل سيلينيت الصوديوم ، 5 ميكروغرام / مل ترانسفيرين ، 10 نانوغرام / مل أنسولين ، و 1 ملي مولار من الأحماض الأمينية غير الأساسية.
5. الثقافة المشتركة بين TCs و GCs
- قم بإعداد غرفة التلقيح لزراعة خلايا theca (الشكل 1 أ).
- ضع الملحق المطلي رأسا على عقب في طبق أكبر (على سبيل المثال ، لوح 12 بئر).
- ضع الأنبوب المقطوع والمعقم على ملحق مقلوب (انظر الخطوة 4.1). تأكد من تثبيت الأنبوب بإحكام على الملحق لمنع تسرب الوسائط.
- قم بإذابة خلايا theca المحفوظة بالتبريد بسرعة في حمام مائي 37 درجة مئوية لمدة 3-5 دقائق وانقل معلق الخلية مباشرة بعد الذوبان إلى الوسط المسخن مسبقا.
- قم بالطرد المركزي لتعليق خلية theca عند 500 × جم لمدة 3 دقائق في درجة حرارة الغرفة (في المتوسط 20 درجة مئوية) وتخلص من المادة الطافية. أضف α-MEM المكمل وأعد تعليق الخلايا بعناية.
- بذرة 1.7-1.8 × 10⁵ خلايا لكل إدخال في غرفة التلقيح في حجم نهائي يبلغ 200 ميكرولتر من الوسائط. قم بتضمين ثلاث نسخ تقنية على الأقل لكل شرط.
- لإغلاق طبق زراعة الخلايا بغطاء ، قد يكون من الضروري زيادة المسافة بين الطبق والغطاء عند استخدام غرفة التلقيح.
- استخدم الأغطية المقطوعة والمعقمة من أنابيب التفاعل سعة 1.5 مل (انظر الخطوة 4.1) وضعها في كل ركن من أركان ألواح زراعة الخلايا. ستعمل الأغطية كدعامات لرفع غطاء اللوحة قليلا ، مما يوفر مساحة كافية لغرفة التلقيح مع الاستمرار في تغطية طبق الاستزراع بشكل كاف.
- أغلق لوحة البئر بعناية ، وتأكد من بقائها مستقرة ولا تلمس الغشاء أو الغرفة.
- انقل اللوحة برفق إلى حاضنة زراعة الخلايا المرطبة.
- احتضان خلايا theca لمدة 3 أيام عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 للسماح بربط الخلية بالغشاء.
- اقلب الملحق بعد 3 أيام من الاستزراع للتحضير للبذر باستخدام GCs (الشكل 1 ب).
- قم بإعداد طبق 24 بئرا واملأه ب 500 ميكرولتر من الوسائط في كل بئر من البئر المرغوبة.
- باستخدام ماصة ، قم بإزالة جميع الوسائط من غرفة التلقيح. قم بإزالة غرفة التلقيح بعناية من الملحق باستخدام الملقط.
- ضع الملحق مع خلايا theca المرفقة في اللوحة المعدة المكونة من 24 بئرا ، مع التأكد من أن TCs متجهة لأسفل (انظر الشكل 1 ب لمزيد من التفاصيل).
- لزرع الخلايا الحبيبية من الحفظ بالتبريد ، قم بتنفيذ الخطوتين 5.2 و 5.3.
- بذرة ما يقرب من 1.0 ×10 5 خلايا لكل إدخال في حجم نهائي يبلغ 250 ميكرولتر من الوسائط الموضوعة داخل الإدخال.
- بعد ذلك ، احتضان الاستزراع المشترك عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 لمدة ستة أيام أخرى.
- قم بإجراء تبادل الوسائط كل 48 ساعة بعد بذر GC عندما يتم استبدال ثلثي وسائط الثقافة فقط. هذا من شأنه أن يقلل من إجهاد الإجراء ويساعد على التكيف مع الوسائط المضافة حديثا.
6. التحليل اللاحق لخلايا الثيكا والحبيبات المستزرعة
- قم بإجراء تقييم مورفولوجي لخلايا theca و granulosa في جميع أنحاء ثقافة الخلايا باستخدام مجهر تباين الطور لمراقبة الارتباط والانتشار لكلا النوعين من الخلايا (انظر الشكل 3).
- لتحليل هرمون الستيرويد ، اجمع الوسائط وقم بتجميدها عند -20 درجة مئوية. استخدم طريقة مناسبة لتحليل تركيزات هرمونات الستيرويد المطلوبة (على سبيل المثال ، في سير العمل هذا ، تم تحليل الاستراديول عبر RIA5،29).
ملاحظة: تحليل هرمون الستيرويد يساعد على تقييم الحالة الفسيولوجية للثقافة7. - لتحليل التعبير الجيني ، قم أولا بعزل الحمض النووي الريبي بتقنية مناسبة (مثل إجراءات المجموعة).
ملاحظة: يجب العلم أنه أثناء إجراء العزل ، يتم تحضير كلا النوعين من الخلايا بشكل مستقل عن بعضهما البعض.- قم بفصل الخلايا من جانبي الغشاء بكاشف مناسب (على سبيل المثال ، التربسين أو الأكوتاز). ضع وسط التفكك في كل من الملحق (على سبيل المثال ، 200 ميكرولتر من accutase) وآبار اللوحة (على سبيل المثال ، 500 ميكرولتر من accutase) بحيث يكون الغشاء محاطا بالكامل بوسط التفكك.
- اجمع الخلايا الحبيبية من الملحق ، بينما يمكن جمع خلايا theca المنفصلة من البئر. انقل كل نوع من أنواع الخلايا إلى أنبوب سعة 1.5 مل.
- قم بالطرد المركزي للخلايا عند 500 × جم لمدة 3 دقائق وتخلص من المادة الطافية.
- تحلل الخلايا ، وإجراء عزل الحمض النووي الريبي وبعد ذلك قياس تركيز الحمض النووي الريبي.
ملاحظة: يمكن إيقاف البروتوكول بعد تحلل الخلايا لمعظم إجراءات العزل بحيث يمكن تخزين العينات عند -20 درجة مئوية على المدى القصير. لتخزين أطول ، يمكن تخزين الخلايا المتحللة عند -80 درجة مئوية. - بعد ذلك ، قم بتجميع (كدنا) لقياس وفرة النصوص ذات الأهمية بواسطة qPCR. يستخدم تخليق (كدنا) 100 نانوغرام من الحمض النووي الريبي مع بادئات سداسي عشوائي وقليل التيار الكهربائي. بالنسبة إلى qPCR ، تم استخدام الاشعال الخاصة بالجينات كما هو موضحسابقا 5،30. باختصار ، كانت ظروف الدورة كما يلي: الحضانة المسبقة عند 95 درجة مئوية لمدة 5 دقائق ، 40 دورة تمسخ عند 95 درجة مئوية لمدة 20 ثانية ، التلدين عند 60 درجة مئوية لمدة 15 ثانية ، التمديد عند 72 درجة مئوية لمدة 15 ثانية ، واكتساب الفلورسنت أحادي النقطة لمدة 10 ثوان. تم تضخيم معيار خارجي لخمسة تركيزات مختلفة (5x10-12- 5x10-16 g DNA / تفاعل) بشكل مشترك. لتطبيع وفرة النسخ ، تم حساب المتوسط الهندسي ل RPLP0 و TBP.
- للقضاء على التلوث المتبادل المحتمل ، قم بتقييم نقاء مستحضرات خلايا theca و granulosa من خلال تحليل التعبير الجيني للعلامات الخاصة بالخلية CYP17A1 و CYP19A1 من مستحضرات الخلايا المعزولة حديثا من TCs و GCs (الشكل 2).
ملاحظة: يجب أن يتضمن التقييم الإحصائي ما لا يقل عن ثلاث نسخ مكررة من مزارع الخلايا المختلفة. في هذا الإعداد التجريبي ، تم إجراء اختبار t أو ANOVA أحادي الاتجاه بعد التحقق من الحالة الطبيعية والتباين.
النتائج
على الرغم من عزل TCs و GCs باستخدام تقنيات فصل ميكانيكية راسخة تعتمد على تجزئة المسامي ، فقد تم تقييم التعبير عن الجينات الخاصة بنوع الخلية CYP17A1 و CYP19A1 للقضاء على خطر التلوث المتبادل. تم التعبير عن CYP17A1 حصريا في TCs المعزولة حديثا ، بينما تم التعبير عن CYP19A1 في الغالب في GCs المعزولة حديثا (الشكل 2).
يتيح نظام الزراعة المشتركة تجزئة خلايا ثيكا البقرية والحبيبات على الجانبين المتعارضين لإدراج الغشاء ، وبالتالي تقليد التنظيم المكاني في الجسم الحي . بعد ثلاثة أيام في الثقافة ، أظهرت TCs مورفولوجيا مسطحة وممدودة لأنها تنتشر عبر سطح غشاء الإدخال المطلي بالكولاجين ، مما يشير إلى الارتباط الناجح (الشكل 3 أ). عند استزراعها بمفردها لمدة 9 أيام بأكملها ، استمرت TCs في التكاثر ووصلت إلى الالتقاء بحلول اليوم 9 (الشكل 3 ب). في المقابل ، طورت GCs المزروعة بمفردها لمدة 6 أيام على غشاء الإدخال المطلي بالكولاجين نمطا ظاهريا يشبه الخلايا الليفية ، وهو سمة من سمات GCs في المختبر (الشكل 3 ج). بالإضافة إلى ذلك ، كما هو موضح سابقا ، تميل GCs إلى تكوين مجموعات ، وهي سمة نموذجية لهذه الخلايا في الثقافة5،7،31،32. في نظام الزراعة المشتركة ، لم يلاحظ أي اختلافات مورفولوجية واضحة في TCs أو GCs عند مقارنتها بالثقافات الأحادية المطابقة للوقت (الشكل 3D) ، مما يشير إلى أن البيئة القائمة على الإدراج تحافظ على السلوك الخلوي الطبيعي. ومع ذلك ، نظرا للقيود الفنية ، لا يزال التقييم المجهري للزراعة المشتركة يمثل تحديا ، لا سيما في تمييز وتقييم مورفولوجيا TC بشكل مستقل عن الخلايا الأخرى. للتغلب على هذه القيود ، يتم حاليا معالجة بروتوكول محسن لتثبيت الخلايا وفقا لاستكشاف استراتيجيات بديلة لتحديد الخلايا في حالة عدم وجود أجسام مضادة خاصة بالخلايا للتلوين المناعي.
تم تقييم وظيفة نظام الاستزراع المشترك من خلال تحليل إنتاج الهرمونات والتعبير عن جينات العلامات الرئيسية ل TCs و GCs33،34 ، مما يؤكد الأدوار الستيرويدية الخاصة بنوع الخلية. كشفت المقارنة بين الاستزراع الأحادي GC ونموذج الاستزراع المشترك عن مستويات مماثلة من الاستراديول (E2) المنتجة في المختبر. ومع ذلك ، كما هو متوقع ، أنتجت الثقافة الأحادية TC كميات ضئيلة فقط من E2 ، بما يتفق مع فرضية 2-cell-2-gonadotropin (الشكل 4 أ) 15 ، والتي تنص على أن خلايا theca تفتقر إلى القدرة على تصنيع E2 بشكل مستقل.
لمزيد من التقييم للأهمية الفسيولوجية لظروف الاستزراع ، تم فحص التعبير عن جينات العلامة الرئيسية33. وفقا لفرضية موجهة الغدد التناسلية 2-2-2-GAGENTOPIN ، تم التعبير عن CYP19A1 في الغالب في GCs ، بينما تم اكتشاف CYP17A1 بشكل أساسي في TCs ، وهو نمط لوحظ في كل من ظروف الزراعة الأحادية والمشتركة (الشكل 4 ب ، ج). والجدير بالذكر أن وفرة النسخ CYP19A1 كانت أعلى في GCs داخل نظام الاستزراع المشترك مقارنة بالثقافة الأحادية GC ، على الرغم من عدم وجود اختلافات ملحوظة في تركيزات الاستراديول.
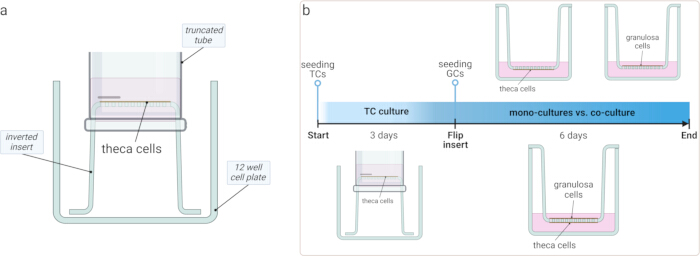
الشكل 1: التمثيل التخطيطي لإعداد زراعة الخلايا. (أ) رسم تخطيطي يوضح غرفة التلقيح المصممة خصيصا ، والتي تستخدم أنبوبا مقطوعا على الملحق المقلوب لمنع تسرب الوسائط طوال فترة الاستزراع الأولية. (ب) الجدول الزمني للإجراء التجريبي: تمت زراعة TCs على الملحق المقلوب لمدة ثلاثة أيام للسماح بالتوصيل. تم قلب الإدخال ، وتم زرع GCs على الجانب الآخر ، تليها ستة أيام إضافية من الثقافة. قارنت الدراسة TCs و GCs المستزرعة بشكل منفصل بنظام الاستزراع المشترك TC-GC. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
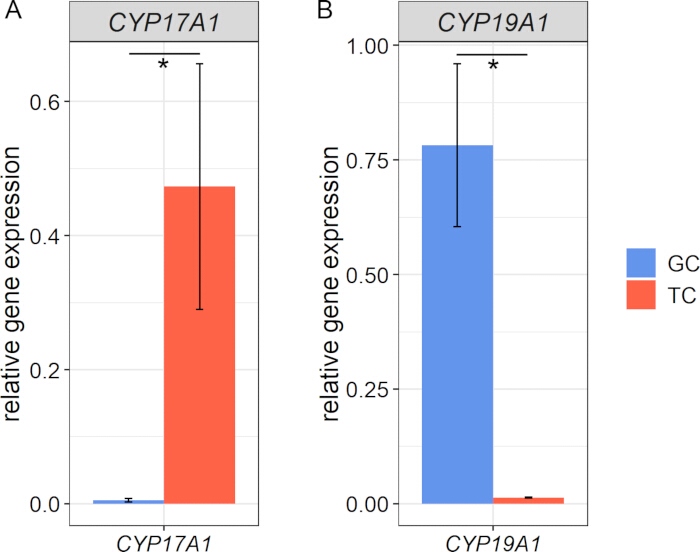
الشكل 2: التعبير الجيني عن العلامات الخاصة بنوع الخلية في الخلايا الحبيبية المعزولة حديثا وخلايا ثيكا. (أ) تم التعبير عن CYP17A1 حصريا في TCs ، بينما (ب) تم اكتشاف CYP19A1 في الغالب في GCs ، مما يؤكد الخصوصية والنقاء الأولي لمجموعات الخلايا المعزولة قبل الثقافة. يتم تقديم البيانات كتعبير نسبي طبيعي إلى المتوسط الهندسي للجينات المرجعية RPLP0 و TBP. يتم عرض المتوسطات والخطأ المعياري للوسائل ، وتم اختبار البيانات للتأكد من طبيعتها وتباين ، وتشير العلامات النجمية إلى اختلافات ذات دلالة إحصائية (ن = 3 ، اختبار t). الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
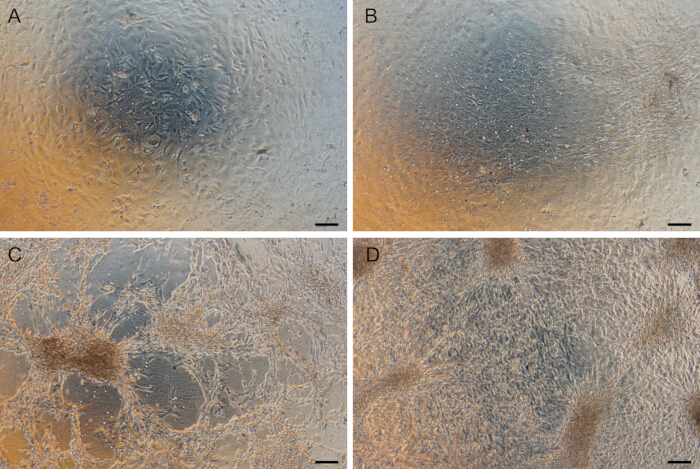
الشكل 3: مورفولوجيا خلايا theca و granulosa في الثقافة. (أ) تم إرفاق TCs المزروعة لمدة 3 أيام بغشاء الإدخال المطلي بالكولاجين. (ب) نمت TCs إلى الالتقاء بعد فترة 9 أيام بأكملها في الثقافة الأحادية. (ج) تعرض GCs النمط الظاهري النموذجي الشبيه بالخلايا الليفية بعد 6 أيام في الثقافة. (د) لا يظهر الاستزراع المشترك للمناطق الانتقالية والمناطق المئوية أي اختلاف مورفولوجي واضح مقارنة بالمزارع الأحادية المتطابقة زمنيا المعنية. تم التقاط هذه الصورة بعد 6 أيام من ثقافة GC و 9 أيام من ثقافة TC (عند نقطة نهاية تجربة الاستزراع المشترك). أشرطة المقياس 100 ميكرومتر. الرجاء النقر هنا لعرض نسخة أكبر من هذا الشكل.
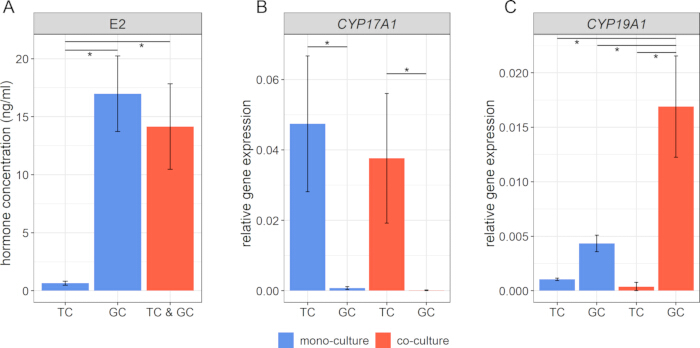
الشكل 4: تحليل العلامات الوظيفية في نظام الزراعة المشتركة. (أ) تركيزات هرمونات الاستراديول (E2) تؤكد الوظيفة الفسيولوجية لنظام زراعة الخلايا. (ب ، ج) يوضح تحليل التعبير الجيني لعلامة TC CYP17A1 وعلامة GC CYP19A1 الهوية والحالة الوظيفية لكلا مجموعتي الخلايا. تم استخدام المتوسط الهندسي للجينات المرجعية RPLP0 و TBP لحساب التعبير النسبي. يتم عرض الوسائل والخطأ المعياري للوسائل ، وتم اختبار البيانات للتأكد من طبيعتها وتباين ، وتشير العلامات النجمية إلى اختلافات ذات دلالة إحصائية (ن = 3 ، تحليل مستمر أحادي الاتجاه). الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
المناقشة
الشرط الأساسي لأداء نموذج الزراعة المشتركة هذا هو عزل جيد الأداء لكلا النوعين من الخلايا لمنع أي تلوث متبادل. تم تقييم نقاء كل من مستحضرات الخلية من خلال التعبير الجيني للعلامة الخاصة ب TC CYP17A1 والعلامة الخاصة ب GC CYP19A1. كما هو موضح من قبل ، أظهرت تقنية عزل GC و TC عدم وجود تلوث متبادل ذي صلة30.
يسمح نموذج الزراعة المشتركة هذا بالثقافة المتزامنة لخلايا theca و granulosa على جانبي الغشاء ، مما يحاكي تنظيمها المكاني داخل المسام ويدعم الحالة الفسيولوجية لكلا مجموعتي الخلايا3. يتم تعزيز صلاحية النموذج من خلال ملف إنتاج الهرمونات وأنماط التعبير الجيني التي تتماشى مع فرضية 2-cell-2-gonadotropin15. كما هو متوقع ، تؤكد مستويات الاستراديول المنخفضة في الثقافة الأحادية TC أن خلايا theca وحدها غير قادرة على تصنيع الاستراديول ، مما يدعم المعرفة الراسخة بتكوين الستيرويدات الجريبي35. على الرغم من ارتفاع CYP19A1 التعبير في GCs المشتركة ، ظلت مستويات الاستراديول قابلة للمقارنة مع الزراعة الأحادية GC ، مما يشير إلى تأثير الآليات التنظيمية مثل توافر الركيزة أو تثبيط التغذية المرتدة أو اختلافات نشاط الإنزيم. هناك ما يبرر مزيد من الاستكشاف في مسارات الإشارات والآليات الأساسية ، كموضوع للدراسات المستقبلية. ومع ذلك ، فإن إنشاء نظام وظيفي للاستزراع المشترك للمناطق الانتقالية والأبقار هو أمر حتمي ، على النحو المنصوص عليه في هذه الدراسة. ركزت الدراسة الحالية على إنتاج الاستراديول ومستويات تعبير mRNA من CYP17A1 و CYP19A1 كمؤشرات رئيسية لوظيفة نموذج الاستزراع المشترك. كلاهما يمثل علامات حساسة لوظيفة الخلية الحبيبية وخلية ثيكا4،8،36 ويتماشيان مباشرة مع فرضية 2-cell-2-gonadotropin15. مع الاعتراف بأهمية التعبير عن البروتين ، فإن الافتقار إلى الأجسام المضادة الموثوقة حال دون تقييمه الدقيق. لذلك ، كان التحليل الشامل لمستويات البروتين خارج نطاق هذا التحقيق الأولي.
بشكل عام ، يعد هذا النموذج تطورا إضافيا لنموذج الثقافة التقليدي ثنائي الأبعاد ، والذي يحاكي جزئيا بنية بصيلات المبيض3. تدعم النتائج الحالة الفسيولوجية لكلا جزيئات الخلية التي تم الكشف عنها من خلال التعبير عن علامات حساسة لفسيولوجيا GC و TC.
تتمثل إحدى المزايا على نماذج الثقافة ثنائية الأبعاد التقليدية في تسهيل تفاعلات paracrine بين خلايا theca و granulosa مع الحفاظ على فصلها المكاني ، وتقليد البنية المسامية في الجسم الحي بشكل أفضل. في المقابل ، تفتقر أنظمة الاستزراع المشترك على الأطباق ، حيث يتم خلط TCs و GCs في بئر واحد ، إلى هذا التنظيم الهيكلي. طبقت الدراسات التي تستخدم مثل هذه الأنظمة بشكل شائع نسبة GC: TC من 4: 119،20،21 ، لكن هذا النهج لا يعكس التجزئة الموجودة في الجسم الحي ، وبالتالي قد لا يكون مجديا لتحليل تبادل الركيزة. علاوة على ذلك ، لا يمكن اكتشاف التغيرات الموجودة على مستوى الخلية بسهولة ، عندما يجب فرز خليط GC-TC بطريقة معقدة.
لا تزال نماذج الزراعة المشتركة ثلاثية الأبعاد للخلايا الحبيبية والخلايا الثانوية نادرة ، لكن المحاولات المبكرة أظهرت نتائج واعدة. وصفت مجموعة Kotsuji22،23،24،37 سابقا تفاعل الخلايا الحبيبية والخلايا الجربونية في الثقافة باستخدام غشاء الكولاجين كفاصل مادي. ومع ذلك ، اعتمد هذا النظام على غشاء كولاجين مصمم خصيصا ، مما يجعل قابلية التكاثر والتوحيد القياسي أمرا صعبا. في المقابل ، يستفيد نموذج الاستزراع المشترك المقدم من إدخالات الثقافة المعلقة المتاحة تجاريا ، والتي تعزز قابلية التكاثر والتوحيد القياسي وجودة المنتج ، مما يضمن قابلية تطبيق أوسع عبر المختبرات. على الرغم من أن النموذج المقدم هنا أدى إلى إنتاج استراديول أعلى من النماذج السابقة ، إلا أن مقارنة هذه النماذج صعبة ، لأنها تفتقر إلى وحدة مكملات زراعة الخلايا ، خاصة التركيزات المستخدمة26 أو الاستخدام الإضافي ل IGF-122،23،24،37.
واحدة من أهم الخطوات في الإجراء هي ثقافة TCs داخل غرفة التطعيم. يعد التأكد من وضع الغرفة بإحكام على الملحق المقلوب أمرا ضروريا لمنع تسرب الوسائط ، مما قد يضر بمرفق TC وبقائه. لذلك ، ينصح بالضغط بقوة على غرفة التلقيح على الملحق المقلوب بمساعدة الملقط وفحص وضع غرفة التلقيح بصريا. بالإضافة إلى ذلك ، تتطلب إزالة غرفة التلقيح وقلب الملحق بعد ثلاثة أيام دقة فنية. قد يكون من الضروري بعض التدريب على المهارات لأداء هذه الخطوة دون تعطيل و / أو إتلاف الخلايا المرفقة. اعتبار مهم آخر هو كثافة البذر ل GCs. يمكن أن تؤدي كثافة الخلايا العالية التي تتجاوز المستويات المثلى من 1.0 × 10⁵ خلايا لكل إدخال إلى تمايز GCs ، مما قد يؤثر على الناتج الستيرويدي. علاوة على ذلك ، أسفرت طريقة الحفظ بالتبريد المقدمة عن قابلية للحياة بعد الذوبان بنسبة 80-90٪ لكلا النوعين من الخلايا.
على الرغم من أن النموذج الموصوف يقدم نظاما فسيولوجيا وقابلا للتكرار لدراسة تفاعلات الخلايا الحبيبية والخلايا الثانوية ، إلا أنه يجب مراعاة بعض القيود. هذه الطريقة قابلة للتكيف مع الأنواع الأخرى أيضا. ومع ذلك ، قد تتطلب الاختلافات الخاصة بالأنواع تحسين معلمات زراعة الخلايا ، مثل كثافة الخلايا أو التوقيت أو تكوين الوسائط. تقتصر قابلية التوسع لهذا النموذج على توافر إدخالات زراعة الخلايا ، ولكنها قد تكون كافية لمعظم دراسات المستجيب. أخيرا ، يعد نموذج الثقافة المشتركة هذا خطوة أخرى نحو تقليد حالة المسام في الجسم الحي ، ولكنه لا يزال يفتقر إلى التعقيد الكامل لجريب المبيض.
في الختام ، يمكن تعديل النموذج المقدم بسهولة لاستيعاب الاحتياجات التجريبية المختلفة ، مثل إطالة فترة الاستزراع ، أو تعديل أعداد الخلايا أو النسب ، أو دمج عوامل إضافية. مع مزيد من التطوير ، يمثل هذا النظام أداة قيمة لدراسة وظيفة المسامات ، وتكوين الستيرويدات وإشارات الخلية بين مقصورتي الخلية. بالإضافة إلى ذلك ، فإنه يحمل إمكانات للتطبيقات في علم السموم التناسلية ، مما يوفر منصة خاضعة للرقابة لتقييم تأثير المركبات المختلفة على الخلايا المسامية.
الإفصاحات
يعلن جميع المؤلفين أنه ليس لديهم تضارب في المصالح.
شكر وتقدير
ونود أن نعرب عن تقديرنا لفيرونيكا شرايتر ومارين أندرس وأوليفييه زايدل على مساعدتهم التقنية الممتازة. علاوة على ذلك ، نود أن نعرب عن تقديرنا للمسلخ التجاري "Danish CROWN Teterower Fleisch GmbH" (ألمانيا) ، الذي حصلنا منه على المبايض لهذه الدراسة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 10x محلول الملح المتوازن من هانك HBSS (ث ملغ / كالوريوس ، فينول أحمر) | بيو & باع | بكالوريوس. L201-10 | تذوب في ماء عالي النقاء ؛ اضبط الرقم الهيدروجيني إلى 7.4 من محلول الهضم (HBSS و HEPES) وقم بإجراء الترشيح المعقم قبل الاستخدام |
| إبرة 18 جرام ، 40 مم ، قطر 1.2 مم | روث | 281 طن 1 | إبرة يمكن التخلص منها ، اختصار |
| حقنة 3 مل (Omnifix Luer) | روث | 22.1 ريال | |
| أكوتاز | ميرك | أ 6964 | فرع الشركة: سيجما ألدريتش |
| أمفوتريسين ب (250 & ميكرو; جم / مل) | بيو & باع | بكالوريوس. AB17.01050 | |
| أندروستينيديون | ميرك | 46033 | نستخدم محلول مخزون 10 ملي مولار ، مخفف بنسبة 100٪ من الإيثانول ؛ فرع الشركة: سوبيلكو |
| مجهر كارل زايس تكنيفال2 | كارل زايس جينا | لا ينطبق | تستخدم مع ضوء الحادث Schott KL 1600 LED |
| BSA (5٪) | ميرك | أ 3311 | فرع الشركة: سيجما ألدريتش |
| مصفاة خلية (100 & م حجم المسام) | سارستيدت | 83.3945.100 | تركيب أنابيب الطرد المركزي سعة 50 مل |
| الكولاجين R (0.2 ٪) | سيرفا | 47254 | |
| الكولاجيناز NB8 (10٪) | نوردمارك | S1745601 | |
| حاوية تجميد الخلايا CoolCell LX | ميرك | CLS432002 | منتج من كورنينج |
| قوارير الحفظ بالتبريد (2 مل) | TPP فاوست | TPP89020 | |
| طبق ثقافة ، 12 بئر ، قاع مسطح | TPP فاوست | TPP92112 | |
| طبق ثقافة ، 24 بئر ، قاع مسطح | TPP فاوست | TPP92424 | |
| طبق ثقافة ، 6 آبار ، قاع مسطح | TPP فاوست | TPP92006 | |
| DMSO | روث | 4720.1 | |
| DPBS بدون Ca2+, Mg2+ | بيو & باع | بكالوريوس. ال 182-10 | يذوب في ماء فائق النقاء والأوتوكلاف قبل الاستخدام |
| استراديول ، 17 ب- [2،4،6،7-3H] | هارتمان أناليتيك | ART1555 | |
| مصل ربلة الساق الجنينية (FBS Superior Stabil) | بيو & باع | FBS. س 0615 | |
| FSH (~ 7,000 وحدة دولية / مجم ؛ من الغدة النخامية البشرية) | ميرك | إف 4021 | نحن نفضل استخدام حل مخزون من 2 & ز / مل ، مخفف في 0.9 ٪ كلوريد الصوديوم ؛ فرع الشركة: سيجما ألدريتش |
| إدراج زراعة الخلايا المعلقة (0.4 µ م حجم المسام) | سيلكيورت | 9320412 | أثناء الطلب كن على دراية بالخصائص المختلفة للإدخالات ؛ نحن نفضل غشاء PET شفاف للفحص المجهري التباين للطور |
| HEPES (1 م) | روث | 9105.2 | اضبط الرقم الهيدروجيني إلى 7.4 من محلول الهضم (HBSS و HEPES) وقم بإجراء الترشيح المعقم قبل الاستخدام |
| هولو ترانسفيرين (ماشية) | ميرك | تي 1283 | تذوب في ماء معقم فرع الشركة: سيجما ألدريتش |
| مجموعة innuPREP RNA الصغيرة 2.0 | IST innuscreen | 845-KS-2040250 | |
| الأنسولين (10 مجم / مل ؛ من البنكرياس البقري) | ميرك | ط0516 | تذوب في 1x PBS ؛ فرع الشركة: سيجما ألدريتش |
| L-الجلوتامين (200 ملم) | بيو & باع | بكالوريوس. ك 0283 | |
| LR3-IGF-1 | ميرك | ط1146 | نحن نستخدم محلول مخزون من 200 µ ؛ ز / مل ، مذاب في 10 ملي حمض الهيدروكلوريك و 1x PBS مع 1 مجم / مل BSA. فرع الشركة: سيجما ألدريتش |
| NanoDrop 1000 مقياس الطيف الضوئي | ثيرماسايفكتيفيك | لا ينطبق | قياس تركيز الحمض النووي الريبي |
| NEA (100x) | بيو & باع | بكالوريوس. ك 0293 | |
| البنسلين / الستربتومايسين (10،000 وحدة دولية / 10 مجم / مل) | بيو & باع | بكالوريوس. أ2213 | |
| مياه نقية مناسبة لزراعة الخلايا | ميرك | دبليو 3500 | فرع الشركة: سيجما ألدريتش |
| طقم تخليق (كدنا) SensiFAST | بيولين | بيو -65054 | يتم توفيره من خلال شريك التوزيع BioCat |
| بيكربونات الصوديوم (7.5٪) | بيو & باع | بكالوريوس. L1713 | |
| سيلينيت الصوديوم | ميرك | س 9133 | تذوب في ماء معقم فرع الشركة: سيجما ألدريتش |
| ثيرموشاكر TS-100C | فيشر العلمية | 12357627 | تستخدم مع كتلة HC18 (Cat.-No. 12337627) |
| &ألفا ؛ - ميم | بيو & باع | بكالوريوس. إف 0915 |
المراجع
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
إعادة الطباعة والأذونات
الوسوم
