يواجه التضخيم المستقر في المختبر للخلايا الشبيهة بالخلايا الجرثومية البدائية (PGCLCs) ، وهو نموذج بديل مشتق من الخلايا الجذعية متعددة القدرات للخلايا الجرثومية البدائية الجنينية ، تحديات تقنية. يدعم هذا البروتوكول التوسع طويل الأمد ل PGCLCs في حالة المختبر بدون خلايا مصل أو طبقة مغذية.
مقالة منهجية
ثقافة طويلة الأمد للخلايا الشبيهة بالخلايا الجرثومية البشرية البدائية
في هذه المقالة
ملخص
الملخص
الخلايا الجرثومية البدائية (PGCs) هي سلائف شائعة لجميع خلايا السلالة الجرثومية من الذكور والإناث. تنشأ PGCs في أجنة الثدييات المحيطة بالزرع وتصبح سلائف للخلايا الجرثومية الخاصة بالجنس عند التمايز الجنسي لعنف الغدد التناسلية. يعد النموذج في المختبر المعروف باسم الخلايا الشبيهة ب PGC (PGCLCs) ، الذي تم إنشاؤه من الخلايا الجذعية البشرية متعددة القدرات ، بديلا مفيدا ل PGCs الجنينية البشرية ، مما يوفر فرصة فريدة لاستكشاف تكوين الأمشاج البشرية في المختبر. يدعم البروتوكول المقدم هنا التوسع طويل الأمد في المختبر ل PGCLCs البشرية. يتم الحفاظ على PGCLCs المعزولة حديثا في البداية على طبقة تغذية STO ثم يتم توسيعها في حالة خالية من المغذيات على مستخلص الغشاء القاعدي. يمكن أن تكون الثقافة طويلة المدى PGCLCs (LTC-PGCLCs) عبارة عن فرز الخلايا المنشط بالفلورة (FACS) - غنية بالخلايا إيجابية CD38 ويتم تضخيمها بسهولة إلى عشرات الملايين من الخلايا كثقافة رتيبة نقية وخالية من المغذيات وخالية من المصل دون قيود واضحة مثل الشيخوخة. من الممكن عمليا الحصول على مجموعة نقية من أكثر من مليون PGCLCs بشري من بضعة آلاف من PGCLCs المعزولة حديثا. تعد زراعة الخلايا LTC-PGCLC البشرية نموذجا مفيدا ومريحا في المختبر لدراسة بيولوجيا الخلايا الجرثومية البشرية والتمايز في خلايا السلالة الجرثومية النهائية.
المقدمة
الخلايا الجرثومية البدائية (PGCs) هي السلائف الأولى لجميع الخلايا الجرثومية. تنشأ PGCs البشرية من الخلايا السلائف الخلفية - التي يفترض أنها خلايا سلائف سلائف غير ملتزمة - في وقت مبكر بعد الزرع ، والأجنة المعدة في 2-3 أسابيع من الحمل1،2،3،4،5،6،7. لتحديد كل من PGCs للإنسان والفأر ، تلعب مسارات الإشارات التي يتم تنشيطها بواسطة البروتينات المورفوجينية للعظام (BMPs) و WNT3 أدوارا حاسمة3،6. في حين أن تحريض ثلاثة عوامل نسخ ، BLIMP1 و PRDM14 و TFAP2C ، ضروري لمواصفات PGCs للفأر ، في مواصفات PGC البشرية ، يتضاءل دور PRDM14. SOX17 ، الذي يمكن الاستغناء عنه لمواصفات PGC للماوس ولكن لا غنى عنه لمواصفات PGC البشرية ، يتم تحفيزه عن طريق إشارات BMP بطريقة تعتمد حصريا على EOMES أو كل من EOMES و TBXT7،8،9. تهاجر PGCs البشرية من الأرومة الخلفية باتجاه أنلاجين الغدد التناسلية في التلال التناسلية عبر المساريق الظهري في 5-6 أسابيع من الحمل10،11،12،13،14،15،16. قد تكون هجرة PGC البشرية مدفوعة بالانجذاب الكيميائي ، على الرغم من أنها تنتظر التأكيد التجريبي. الملامح النسخية ل PGCs البشرية المهاجرة ليست متطابقة مع تلك الموجودة في PGCs للفئران في نفس المرحلة17،18. على سبيل المثال ، تعبر PGCs البشرية عن DAZL حتى قبل استقرارها في أنلاجين الغدد التناسلية ، بينما تعبر PGCs للفئران عن DAZL فقط بعد استقرارها الغدد التناسلية9. عند بدء التمايز الخاص بالجنس للخلايا الجسدية الغدد التناسلية ، تخضع PGCs أيضا للتمايز إلى prospermatogonia (المعروف أيضا باسم الخلايا اللذية) أو البوجونيا.
نظرا لأن الوصول إلى الخلايا الجذعية الجنينية البشرية يمثل تحديا كبيرا بسبب الحواجز التقنية والأخلاقية ، فإن استخدام الخلايا الشبيهة ب PGCs (PGCLCs) المشتقة من الخلايا الجذعية متعددة القدرات أصبح شائعا بشكل متزايد3. تشبه PGCLCs للفئران مرحلة ما بعد الهجرة ل PGCs ، والتي تتميز بإزالة الميثيل المتقدمة للحمض النووي الجيني العالمي (gDNA) ، وهي قادرة على توليد المنوية والبويضات المختصة بالإخصاب19،20،21. في المقابل ، تشبه PGCLCs البشرية المراحل المبكرة من PGCs الجنينية مع إزالة ميثيل gDNA العالمي المحدود7،22،23،24. تتراكم الأدلة على أن PGCLCs البشرية ، على الرغم من حالتها غير الناضجة نسبيا ، قادرة على التمايز في المختبر إلى مراحل أكثر تقدما من الخلايا الجرثومية التي تشبه oogonia25،26 أو prospermatogonia27.
منذ أن نشر Irie et al. الجيل الأول من PGCLCs من الخلايا الجذعية البشرية متعددة القدرات في عام 20157 ، نشر عدد من المختبرات بروتوكولات مختلفة لإنتاج PGCLC البشري. تتضمن البروتوكولات القياسية المبكرة تكوين مجاميع الخلايا متعددة القدرات ، والتي يشار إليها غالبا باسم الأجسام الجنينية7،22،24،26،28،29. يمكن إنتاج PGCLCs البشرية باستخدام العديد من البروتوكولات القائمة على الإجمالية التي تشترك في ملفات تعريف النسخ القابلة للمقارنة ، وكلها تعبر بقوة عن جينات علامة PGC الرئيسية مثل PRDM1 و SOX17 و TFAP2C و POU5F1 و NANOS3 ، في حين أن التعبير عن علامة تعدد القدرات SOX2 أو علامة PGC في المرحلة المتأخرة DDX4 عادة ما يتم قمعها24. كما تم الإبلاغ عن محاولات ناجحة لإنتاج PGCLCs بشرية من مزارع الخلايا أحادية الطبقة لتحسين قابلية التوسع والراحة30. على الرغم من أن محصول PGCLCs صغير نسبيا ، إلا أن الإنتاج الناجح ل PGCLCs البشرية من نماذج المختبر المشتقة من الخلايا الجذعية متعددة القدرات للأجنة في مرحلة المعدة يساهم بشكل كبير في توضيح آليات مواصفات السلالة الجرثومية وتطور PGC في المراحل المبكرة31،32،33،34،35،36.
على الرغم من أن إنتاجية وجودة PGCLCs البشرية المنتجة باستخدام طرق زراعة الخلايا المختلفة قد تحسن ، إلا أن الصعوبة التقنية في توسيع زراعة الخلايا ل PGCLCs البشرية تشكل عقبة كبيرة أمام تطبيقها للتجارب التي تتطلب كميات كبيرة من مجموعات الخلايا المتجانسة ، مثل الفحص الكيميائي أو الجيني ، بالإضافة إلى إنتاج مراحل متقدمة من الخلايا الجرثومية26. أبلغ جيل وآخرون عن صيانة PGCLCs البشرية لمدة تصل إلى 21 يوما على مغذيات STO في وسط قائم على FR10 يحتوي على عامل الخلايا الجذعية (SCF) ، و 2.5٪ مصل العجل الجنيني (FCS). ومع ذلك ، تميل PGCLCs إلى الاختلاف من الهوية الشبيهة ب PGC إلى أنواع أخرى من الخلايا التي قد لا تكون ذات صلة بتطور الخلايا الجرثومية37. موراس وآخرون القضاء مرارا وتكرارا على مثل هذه الخلايا غير المرغوب فيها من الثقافة بواسطة FACS في كل مرور وأظهر أن PGCLCs البشرية قادرة على الحفاظ على إمكانات الانتشار على المدى الطويل في المختبر38. في وقت لاحق ، موراس وآخرون أبلغ عن تضخيم ناجح ل PGCLCs البشرية في وسط يحتوي على 2.5٪ FCS39 ، لكن طريقتهم تتطلب خلايا طبقة التغذية m220-5 ، والتي تظهر تلقائيا استنساخا فرعية مقاومة ل MMC للخلايا الجنينية للفأر m220 التي تعبر عن الشكل المرتبط بالغشاء من الفأر SCF من ناقل خارجي40. اعتبارا من اليوم ، لم يتم إيداع خلايا m220-5 بعد في مستودع متاح للجمهور. وبالتالي ، لا يزال توسيع ثقافة PGCLC البشرية في المختبر تحديا كبيرا لتشمل عددا كبيرا من الخلايا المتجانسة ، مع الحفاظ على خصائصها الشبيهة ب PGC في حالة بسيطة لا تتطلب موردا غير قياسي لخلية التغذية وخالية من الكواشف المشتقة من ، والتي قد تختلف كفاءتها بين الكثير المختلفة.
للتغلب على العقبة التقنية المذكورة أعلاه ، تم تطوير طريقة تتيح التوسع طويل الأمد في المختبر ل PGCLCs البشرية كمجموعة خلايا متجانسة ، مع الحفاظ على الخصائص الشبيهة ب PGC في حالة خالية من خلايا المصل أو طبقة التغذية ،41. نظرا لأن PGCLCs البشرية تعبر عن التيلوميراز ، فإن هذه الخلايا تتضخم بمعدل ثابت دون أي علامات على الشيخوخة أو الانحراف عن أنواع الخلايا الأخرى لمدة 150 يوما على الأقل. تحافظ ثقافة PGCLCs طويلة المدى (LTC-PGCLCs) على خصائصها النسخية البشرية الشبيهة ب PGC ، على الرغم من أن gDNA العالمي الخاص بها يتم إزالة ميثيل بشكل متواضع عند المقاطع المتكررة. يتم تحويل LTC-PGCLS بسهولة إلى خلايا شبيهة بالخلايا الجرثومية الجنينية متعددة القدرات (EGCLCs) ، مما يؤدي إلى استعادة النسخ الشبيه ب iPSC وميثيلوم gDNA ، على الرغم من فقدان التقييد الأليلي المطبوع لتعبير H19 RNA. LTC-PGCLCs قادرة أيضا على التمايز إلى خلايا معبرة عن DAZL تشبه prospermatogonia في xrTestis xenobiotic organoid27. وبالتالي ، فإن نموذج LTC-PGCLC البشري يمثل نوعا جديدا من موارد زراعة الخلايا ذات الصلة بقدرات متعددة التي يتم صيانتها بثبات والتي تحتفظ بشكل دائم بالخصائص البيولوجية ل PGCLCs ويمكن توسيعها بسهولة في المختبر كخط خلوي مستقر.
توضح هذه المقالة طريقة تكييف السكان النقيين المعزولين حديثا والمخصبين ب FACS من PGCLCs البشرية لثقافة الصيانة طويلة الأجل الخالية من المصل من خلال الدعم الزمني بواسطة خلايا طبقة التغذية القياسية STO ثم في حالة خالية من المغذيات على مستخلص غشاء الطابق السفلي (BME). تدعم هذه الطريقة التوسع في المختبر ل PGCLCs البشرية المنتجة باستخدام البروتوكول المعتمد على الجسم الجنيني ، كما هو موضح سابقا24،41،42 أو أبلغ عنها Sasaki etal 22 ، وطريقة الزراعة أحادية الطبقة التي أبلغ عنها Overeem etal 30. عند تطبيقه على PGCLCs البشرية المحضرة كما هو موضح41 ، يمكن توسيع مجموعة أولية من 10,000 خلية إلى ما يقرب من 1 × 10⁹ خلايا في 1.5 - 2 أشهر مع 4-4.5 يوم من السكان مضاعفة الوقت41. من المتوقع أيضا تطبيق هذه الطريقة على PGCLCs البشرية التي تنتجها طرق أخرى.
البروتوكول
1. تحضير وسائط زراعة الخلايا
- قم بإعداد الوسائط كما هو موضح في الجدول 1 والجدول 2 والجدول 3 والجدول 4. تخزين aliquots من هذه الوسائط مجمدة.
- قم بإعداد الوسط القاعدي PGCLC كما هو موضح في الجدول 1. اصنع 40 مل من الحصص واحفظها في درجة حرارة -20 درجة مئوية لمدة 6 أشهر. قم بإعداد STO middle 1 كما هو موضح في الجدول 2. قم بتخزين 50 مل من الاقتباس في أنابيب طرد مركزي سعة 50 مل عند 4 درجات مئوية لمدة شهر واحد.
- قم بإعداد STO medium 2 كما هو موضح في الجدول 3. استخدم على الفور. قم بإعداد وسيط تخزين خلايا STO المعالجة بالميتومايسين C (MMC-STO) كما هو موضح في الجدول 4. قم بتخزين 10 مل من القواس عند -20 درجة مئوية لمدة 6 أشهر.
تنبيه: نظرا لأن ثنائي ميثيل سلفوكسيد يعتبر خطيرا (سائلا قابلا للاحتراق) ، فيجب إبعاده عن الحرارة أو الشرر أو اللهب المكشوف أو الأسطح الساخنة. اتبع البروتوكول التنظيمي المحلي للتخلص منه.
2. تحضير خلايا STO المعالجة ب MMC
ملاحظة: علاج MMC لخلايا STO يعطل نشاط تكاثرها دون الإضرار بشكل كبير بقدرتها على البقاء. تستخدم خلايا MMC-STO كخلايا طبقة مغذية أثناء الثقافة الأولية ل PGCLCs البشرية (الخطوة 4) بالإضافة إلى مصدر الوسط المكيف الخالي من الخلايا (الخطوة 3).
- قم بزراعة خلايا STO في وسط STO 1 في أربعة أطباق P15 حتى تقترب من التقاء. قم بتغيير STO متوسط 1 إلى 23 مل / طبق. أضف 23 ميكرولتر / طبق من تركيز 10 مجم / مل MMC مباشرة إلى الوسط إلى تركيز نهائي يبلغ 10 ميكروغرام / مل.
- قم بالتدوير جيدا واحتضان عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 لمدة 4 ساعات.
تحذير: يكون MMC قاتلا إذا تم ابتلاع كمية كبيرة ، وهو مادة مسرطنة مشتبه بها. يجب أن تتبع المناولة والتخلص من هذا المركب البروتوكولات التنظيمية المحلية. - اغسل الخلايا ب 20 مل / طبق PBS من Dulbecco (خالي من Ca / Mg) 2x في درجة حرارة الغرفة.
- قم بفصل الخلايا ب 4 مل / طبق TrypLE Express في حاضنة ثاني أكسيد الكربون2 لمدة دقيقتين. الخلايا في تعليق أحادي الخلية عن طريق سحب العينة بلطف.
- انقل طبقين من معلق الخلية (8 مل) إلى أنبوب طرد مركزي سعة 50 مل يحتوي على 30 مل من متوسط STO البارد المثلج -1. كرر مع الطبقين الآخرين لعمل أنبوبين من معلق الخلية 38 مل.
- عد الخلايا في وجود 0.2٪ من التريبان الأزرق لتقييم الجدوى الخلوية باستخدام مقياس الخلايا الدموية أو عداد الخلايا الآلي.
- خلايا الطرد المركزي عند 300 × جم لمدة 5 دقائق عند 4 درجات مئوية. تجاهل الطافية. أعد تعليق كريات الخلايا في وسط تخزين الخلايا المجمدة مثلجة إلى 5 × 10⁶ خلايا / مل.
- قم بإعداد 1 مل من خلايا STO المعالجة ب MMC في القوارير المبردة. قم بتجميد الخلايا ببطء في صندوق الستايروفوم أو جهاز تجميد بطيء واحفظه في درجة حرارة -80 درجة مئوية لمدة تصل إلى 12 شهرا.
3. تحضير وسيط مكيف STO (S-CM)
ملاحظة: يدعم الوسط المكيف الخالي من الخلايا لخلايا MMC-STO (المحضر في الخطوة 2) بقاء وتكاثر PGCLCs البشرية مع قمع انحرافها إلى الخلايا التي تفقد خصائصها الشبيهة ب PGC.
- اليوم 1: قم بإذابة خلايا STO المعالجة ب MMC من المخزونات المجمدة وتلقيح 5 × 10⁶ خلايا في طبق P10 مغطى بالجيلاتين مع 10 مل / طبق STO-medium 2. يتكون الحجم النموذجي للدفعة من 4 إلى 8 أطباق P10. احتضان الخلايا عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 طوال الليل.
- لتغليف الآبار بالجيلاتين ، أضف 1 مل / بئر من 0.1٪ جيلاتين واحتضنه في درجة حرارة الغرفة لمدة 20 دقيقة على الأقل. استنشق محلول الجيلاتين الزائد واترك الآبار مفتوحة في خزانة السلامة الحيوية حتى تجف. قم بتخزين الأواني البلاستيكية المطلية بالجيلاتين في درجة حرارة الغرفة لمدة أسبوعين أو عند 4 درجات مئوية لمدة 3 أشهر.
- قم بإذابة الكميات من الوسط القاعدي PGCLC عند 4 درجات مئوية بين عشية وضحاها.
ملاحظة: لا ينصح بإذابة هذا الوسط بسرعة أكبر عند درجة حرارة أعلى. لا تقم بتخزين الوسط القاعدي PGCLC عند 4 درجات مئوية لأكثر من 1 أسبوع. - اليوم 2: قم بإزالة STO-medium والتخلص منه 2. اغسل الخلايا باستخدام DPBS دافئ (~ 10 مل / طبق) متبوعا بغسلها بوسط PGCLC القاعدي الدافئ (2 مل / طبق). أضف PGCLC الوسط القاعدي الدافئ (12 مل / طبق) واحتضن الخلايا عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 طوال الليل.
- اليوم 3: اجمع كل الوسط المكيف في أنبوب طرد مركزي سعة 50 مل. كرر الوسط القاعدي PGCLC (12 مل / طبق) والحضانة لجمع الوسط المكيف في اليوم التالي من نفس مزرعة خلايا STO. قم بالطرد المركزي للوسط المكيف الذي تم جمعه عند 300 × جم لمدة 5 دقائق عند 4 درجات مئوية. اصنع 10 مل من المادة الطافية (S-CM) في أنابيب طرد مركزي سعة 15 مل. لا تأخذ آخر 3 مل من الوسط المتبقي في الجزء السفلي من الأنابيب سعة 50 مل لتجنب تلوث خلايا MMC-STO في S-CM. قم بتخزين الحصص في درجة حرارة -80 درجة مئوية لمدة تصل إلى 6 أشهر.
- اليوم 4: حصاد S-CM عن طريق تكرار الخطوة 3.4 كل يوم حتى تتدهور ثقافة MMC-STO أحادية الطبقة بعد 5-6 أيام من الاستزراع في الوسط القاعدي PGCLC. توقف عن الحصاد عند فصل 25٪ أو أكثر من الخلايا عن الطبق.
4. تكييف PGCLCs البشرية مع الثقافة طويلة الأجل
- استزراع PGCLCs البشرية المعزولة حديثا على طبقة تغذية MMC-STO. إعداد PGCLCs البشرية باستخدام طريقة منشورة سابقا (Mitsunaga et al.24; Kobayashi et al.41). كما تم نشر بروتوكولات مفصلة لتحريض PGCLC البشري42،43.
- بعد التضخيم الأولي لمدة تصل إلى 28 يوما ، حافظ على PGCLCs على أنها LTC-PGCLCs على BME كمزرعة خالية من المغذيات. خلال هاتين الخطوتين من ثقافة PGCLCs ، استخدم الوسط المكيف ب STO (S-CM ، المحضر في الخطوة 3) مع مكملات SCF ولكن ليس تضمين FCS. مثبط ROCK ضروري فقط بعد المرور.
ملاحظة: بصفتها BME ، تم استخدام Matrigel من الدرجة ESC في مختبرنا. لم تدعم المنتجات التجارية الأخرى التوسع طويل الأجل ل LTC-hPGCLCs. - اليوم 1: تلقيح خلايا طبقة تغذية STO المعالجة ب MMC في ألواح 6 آبار مطلية بالجيلاتين إلى 8 × 10⁴ خلايا / سم2 مع 3 مل / بئر STO-medium 2. احتضان طبقة التغذية عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 طوال الليل.
- اليوم 2: تخلص من STO-medium من المزرعة واغسل الخلايا باستخدام Dulbecco's MEM الدافئ (خالي من المصل) ، 3 مل / جيد. أضف 3 مل / بئر من S-CM مكمل حديثا ب 0.1 ملي مولار 2-Mercaptoethanol ، 50 ميكروغرام / مل حمض الأسكوربيك ، 100 نانوغرام / مل SCF المؤتلف البشري و 10 ميكرومتر Y-27632. قم بتلقيح 500 - 2,000 PGCLCs بشرية معزولة حديثا على طبقة تغذية STO في كل بئر. احتضان الخلايا عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 طوال الليل.
ملاحظة: يميل وجود المصل ، حتى عند التركيزات المنخفضة ، إلى التسبب في ظهور أنواع غير مرغوب فيها من الخلايا من PGCLCsالبشرية 41. يعتمد نمو PGCLCs البشرية بشكل صارم على SCF41. يدعم Y-27632 بقاء PGCLCs البشرية أحادية الخلية في وقت التلقيح ولكنه ليس ضروريا أثناء ثقافة الصيانة. أضف 2-Mercaptoethanol وحمض الأسكوربيك و SCF و Y-27632 طازجا إلى الوسط. في تجربة نموذجية ، يتم تلقيح PGCLCs في جميع آبار صفيحة مكونة من 6 آبار. إذا كان هناك عدد أكبر من PGCLCs متاحا كمادة أولية ، فإن كثافة أعلى تصل إلى 10,000 PGCLCs لكل بئر مقبولة. - اليوم 3: استبدل نصف الوسط (1.5 مل / بئر) ب S-CM دافئ مكمل حديثا ب 0.1 ملي مولار 2-ميركابتوإيثانول ، 50 ميكروغرام / مل حمض الأسكوربيك ، 100 نانوغرام / مل SCF المؤتلف البشري ولكن بدون Y-27632. لا تزعج PGCLCs ، والتي قد يتم فصلها عن طبقة التغذية عن طريق تدفق قوي للوسط.
- الأيام من 5 إلى 28: كرر الخطوة 4.5 كل يومين. نظرا لأن PGCLCs تتكاثر عادة في وقت مضاعفة عدد السكان لمدة 4.5 يوما41 ، تظهر مجموعات صغيرة من PGCLCs في اليوم 6-7 أو بعد ذلك (الشكل 1A-D). ستصبح المجموعات أكثر وضوحا بحلول اليوم 14-15 (الشكل 1E ، F). إذا ظهرت أنواع غير مرغوب فيها من المجموعات الخلوية ذات الخصائص المورفولوجية الشاذة التي تنحرف عن PGCLCs الصحيحة ، فتخلص من الآبار التي تحتوي على مثل هذه المجموعات ، أو حاول القضاء على الخلايا الشاذة باستخدام تقنية الالتصاق التفاضلي الموضحة لاحقا في الخطوة 4.9.
- عندما تتوسع PGCLCs لتشكيل مجموعات تغطي أكثر من 20٪ من مساحة الاستزراع (~ اليوم 28) ، قم بفصل الخلايا باستخدام محلول انفصال الخلية (CDS). قم بإزالة S-CM من آبار مزرعة PGCLC وأضف CDS المسخن مسبقا عند 1 مل / بئر بدون خلايا الغسيل. احتضان الخلايا عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 لمدة 5 دقائق حتى تنفصل PGCLCs عن الآبار.
ملاحظة: يوصى باستخدام Accutase على شكل CDS للتفكك الخفيف. لا تقم بتسخين قرص CDS مسبقا عند 37 درجة مئوية لأكثر من 5 دقائق. يمكن تسهيل انفصال PGCLC عن طريق سحب العاصات اللطيف، ولكن لا يلزم فصل PGCLCs تماما إلى تعليق خلية واحدة. قد تزيد المجاميع الصغيرة من PGCLCs من الجدوى. إذا ظهرت أنواع غير مرغوب فيها من الخلايا ونمت بسرعة ، فاضبط وقت الحضانة في CDS أثناء انفصال الخلايا للمجموعة الانتقائية من PGCLCs ، والتي تميل إلى الانفصال في وقت أبكر من الخلايا المغذية ومعظم أنواع الخلايا غير المرغوب فيها. إذا كان الظهور المستمر لأنواع غير مرغوب فيها من الخلايا يزعج توسع PGCLCs ، فحاول إزالة الخلايا غير المرغوب فيها باستخدام التصاقها الأسرع بالآبار المطلية بالجيلاتين كما هو موضح في الخطوة 4.9. نظرا لأن إثراء PGCLCs بواسطة FACS يميل إلى فقدان جزء كبير من PGCLCs الحية ، قلل حجم مساحة طبقة التغذية وفقا لذلك. - لإيقاف انفصال الخلية بواسطة CDS ، قم بتخفيف تعليق الخلية بحجم 10x من الوسط الأساسي الدافئ PGCLC وجهاز الطرد المركزي عند 300 × جم لمدة 5 دقائق عند 4 درجات مئوية. لاحظ أن النشاط الأنزيمي لبعض CDS ، مثل Accutase ، لا يتم قمعه بواسطة مثبطات المصل أو التربسين. تخلص من المادة الطافية وأعد تعليق الخلايا في 3 مل من S-CM الدافئ المكمل حديثا ب 0.1 ملي مولار 2-Mercaptoethanol ، و 50 ميكروغرام / مل من حمض الأسكوربيك ، و 100 نانوغرام / مل من SCF المؤتلف البشري ، و 10 ميكرومتر Y-27632.
- قم بتلقيح معلق الخلية في آبار من 6 آبار مطلية بالجيلاتين بنسبة 0.1٪ واحتضان عند 37 درجة مئوية في حاضنة ثاني أكسيد الكربون2 لمدة 30 دقيقة لإزالة خلايا MMC-STO (وأنواع الخلايا غير المرغوب فيها) ، والتي تلتصق بسرعة بالآبار المطلية بالجيلاتين.
ملاحظة: يتم تشجيع فحص الخلايا عن طريق الفحص المجهري التباين للطور في 20 دقيقة من الحضانة وكذلك في 30 دقيقة لتقييم التصاق الخلايا المغذية. قد يكون من الضروري إطالة وقت الحضانة إلى 45 دقيقة. إن استخدام FACS أو MACS للقضاء على الخلايا المغذية ليس ضروريا بشكل عام لأن خلايا STO المعالجة ب MMC لا يمكن أن تتكاثر وتتدهور في S-CM. - نقل PGCLCs المستنفدة من الأنواع الشاذة من الخلايا إلى الآبار المطلية بمصفوفة الغشاء السفلي لبدء الزراعة طويلة الأمد الخالية من المغذيات ل PGCLCs البشرية. بالنسبة لبئر واحد في صفيحة مكونة من 6 آبار ، يوصى بتلقيح 1 × 10⁵ PGCLCs قابلة للحياة.
ملاحظة: من الضروري عادة تجميع hPGCLCs من ما يصل إلى 6 آبار لجمع 1 × 10⁵ PGCLCs قابلة للحياة (تلطيخ تريبان الأزرق سلبي) وزرعها في بئر واحد لزيادة كثافة خلايا اللقاح. إذا لم يصل عدد PGCLCs المحصودة إلى 1 × 10⁵ ، فاستخدم حجما أصغر من البئر ، مثل صفيحة 12 بئرا أو 24 بئرا للحصول على كثافة PGCLC عالية نسبيا. بحلول وقت الزراعة الفرعية الأولى ، تتدهور معظم خلايا طبقة تغذية MMC-STO ، ولا تنجو من إجراء المرور. تتم إزالة عدد صغير من خلايا MMC-STO القابلة للحياة بشكل فعال عن طريق تقنية الالتصاق التفاضلي. حتى لو كانت بعض خلايا MMC-STO ملوثة في الآبار المغلفة ب BME ، فإنها ستختفي من المزرعة أثناء المرور المتعدد. - تنمو PGCLCs البشرية كمجموعة خلايا مشتتة للغاية مع عدم وجود علامة كبيرة على الاتصال الجسدي المباشر بين الخلايا الفردية (الشكل 1). إذا ظهرت مجموعات من الخلايا تظهر تفاعلات ضيقة بين الخلايا (الشكل 2 أ) ، فقم بتمرير المزرعة باستخدام التقنية الموضحة في الخطوة 4.7. عادة ما يكون التمرير مرة واحدة في الأسبوع (1: 4) كافيا.
ملاحظة: عادة ما يكون تخصيب FACS لPGCLCs البشرية غير ضروري. ومع ذلك ، إذا تعذر إزالة الخلايا الشاذة غير المرغوب فيها بشكل فعال بعد تقنية الالتصاق التفاضلي المتكررة الموضحة في الخطوة 4.11 ، فإن بضع دورات من تخصيب FACS ل PGCLCs البشرية كخلايا إيجابية CD3842،43 تسهل إنشاء مجموعة نقية من LTC-hPGCLCs. يتم عرض أمثلة على الخلايا الشاذة المشتقة من PGCLC التي تنمو على أطباق مغلفة ب BME في حالة عدم وجود طبقة مغذية في الشكل 3. من المهم الحفاظ على كثافة عالية نسبيا لزراعة خلايا PGCLC لتقليل خطر إحداث أنواع غير مرغوب فيها من الخلايا.- قم بإعداد أطباق مغلفة ب BME كما هو موضح سابقا42،43. قم بإذابة BME على الثلج في الثلاجة أو غرفة باردة طوال الليل. لا تقم بإذابة BME المجمد في درجة حرارة الغرفة أو استخدام حمام ماء دافئ.
- Aliquot BME (~ 200 ميكرولتر ؛ يتم تحديد حجم aliquot من قبل الشركة المصنعة لكل دفعة ويشار إليه على ملصق القارورة) في أنابيب طرد مركزي معقمة ومبردة مسبقا منخفضة الارتباط أو أنابيب حفظ الخلايا بالتبريد على الجليد. من المهم الحفاظ على باردة BME أثناء الاستغناء لتجنب التصلب. قم بتخزين الحصص في درجة حرارة -80 درجة مئوية.
- قم بتخفيف كمية واحدة من BME ب 25 مل من DMEM / F12 المثلج وانتشر إلى ثلاثة أطباق بحجم 10 سم (~ 8 مل / طبق) أو أربعة أطباق من 6 آبار (إجمالي 24 بئرا ، 1 مل لكل بئر). احتضان الأطباق في درجة حرارة الغرفة لمدة 1 ساعة على الأقل. بعد الطلاء ، يمكن إغلاق الأطباق بغشاء شفاف وتخزينها في درجة حرارة الغرفة لمدة تصل إلى 1 أسبوع.
- استنشاق الوسط من الأطباق مباشرة قبل الاستخدام. ليس من الضروري غسل الأطباق المغلفة.
- الحفاظ على كثافة عالية نسبيا من ثقافة LTC-PGCLC على BME لقمع ظهور أنواع غير مرغوب فيها من الخلايا. يوصى بمرور PGCLCs عندما تصل الخلايا إلى أكثر من 25٪ من التقاء القيا. يجب تغيير نصف الوسط (1.5 مل / بئر) مع S-CM الدافئ المكمل حديثا ب 0.1 ملي مولار 2-ميركابتوإيثانول ، و 50 ميكروغرام / مل حمض الأسكوربيك ، و 100 نانوغرام / مل من SCF المؤتلف البشري.
ملاحظة: يزيد تلقيح PGCLCs بكثافة أقل من خطر إنتاج خلايا غير مرغوب فيها. نظرا لأن وقت مضاعفة عدد سكان PGCLCs البشري هو حوالي 4.5 يوما41 ، فإن المرور الأسبوعي الروتيني عادة ما يكون كافيا للحفاظ على الثقافة طويلة الأجل. لا يعد إدراج مثبط ROCK (Y-27632) ضروريا إلا بعد المرور لتحسين جدوى PGCLC. - لا تزعج PGCLCs ، والتي قد يتم فصلها عن طبقة التغذية عن طريق تدفق قوي للوسط.
ملاحظة: نظرا لأن PGCLCs البشرية تعبر عن التيلوميراز ، فإنها تتكاثر دون علامات واضحة للشيخوخة مثل تقصير التيلوميرات أو التعبير عن β galactosidase المرتبط بالشيخوخة41. - عندما اكتسبت PGCLCs البشرية تكثرا مستقرا دون توليد كميات كبيرة من أنواع الخلايا غير المرغوب فيها ، افحص خصائصها الشبيهة ب PGC عن طريق التعبير عن التنميط لجينات العلامة.
ملاحظة: يتم تشجيع الأساليب التحليلية المناسبة لتوصيف كل خلية مفردة (مثل التألق المناعي أو FACS أو تسلسل الحمض النووي الريبي أحادي الخلية) لتقييم التلوث المحتمل لأنواع الخلايا غير المرغوب فيها. إذا كانت نتائج هذه التحليلات تدعم الطبيعة الشبيهة ب PGC ل PGCLCs ، تأكيد إنشاء ثقافة LTC-hPGCLC. - قم بتخزين LTC-PGCLCs المجمدة في وسط تجميد الخلايا (1 × 10⁶ خلايا / مل لكل قارورة مبردة). بدءا من إجمالي 10,000 PGCLCs بشري كمادة أولية ، يمكن تحقيق العائد الإجمالي البالغ 1 × 10⁶ PGCLCs في 6 أسابيع. ضع صندوقا ورقيا أو بلاستيكيا يحتوي على قوارير مبردة في صندوق ستايروفوم قابل للغلق بإحكام. ضع الصندوق المغلق في فريزر -80 درجة مئوية طوال الليل للتجميد البطيء. ثم ضع القوارير في ثلاجة -80 درجة مئوية أو خزان نيتروجين سائل.
- لبدء الثقافة من قارورة من الخلايا المجمدة ، اتبع الخطوات الموضحة أدناه.
- قم بإذابة الخلايا بسرعة في حمام مائي بدرجة حرارة 37 درجة مئوية مع الاهتزاز اليدوي مع الحفاظ على قاع القارورة في الماء. عندما يتم إذابة >80٪ من المحتوى في القارورة ، جفف القارورة بمناديل خالية من النسالة أو ورق مختبر مكافئ وامسح حول الغطاء بمسحة كحولية.
- انقل الخلايا إلى أنبوب طرد مركزي سعة 15 مل يحتوي على وسط قاعدي PGCLC مسخن مسبقا (37 درجة مئوية). إذا بقيت خلايا صغيرة مجمدة في القارورة، فقم باستعادتها باستخدام الوسط القاعدي PGCLC عن طريق سحب العينات.
- خلايا الطرد المركزي على الفور عند 300 × جم لمدة 5 دقائق في درجة حرارة الغرفة وإزالة المادة الطافية.
- أعد تعليق حبيبات الخلية ب 9 مل من S-CM المسخن مسبقا المكمل حديثا ب 0.1 ملي مولار 2-ميركابتوإيثانول ، 50 ميكروغرام / مل حمض الأسكوربيك ، 100 نانوغرام / مل SCF المؤتلف البشري ، و 10 ميكرومتر Y-27632. الخلايا برفق باستخدام أطراف ماصة سعة 1,000 مل.
- تلقيح 3 مل / بئر في 3 آبار من الصفيحة المطلية ب BME لبدء الثقافة. رج الألواح برفق عموديا وأفقيا لتوزيع الخلايا بشكل متساو. تجنب الحركة الدائرية للاهتزاز ، لأن مثل هذه الحركة ستنقل الخلايا إلى مركز الآبار. عادة ما تكون صلاحية الخلايا مباشرة بعد التعافي من مخزون مجمد أكبر من 80٪.
النتائج
النتائج التمثيلية - تشكل PGCLCs عادة مجموعات مرئية على طبقة تغذية MMC-STO في غضون أسبوعين بعد التلقيح (الشكل 1A-D). يستغرق الأمر حوالي 3-4 أسابيع حتى تصبح PGCLCs جاهزة للاستزراع الخالي من المغذيات. نظرا لأن PGCLCs تظهر نشاطا قويا للحركية الخلوية ، فإن تفاعلها بين الخلايا يكون ضعيفا عندما تشكل مجموعات على طبقة التغذية (الشكل 1E ، F). غالبا ما يتم ملاحظة خروج PGCLCs من المجموعات (الشكل 1F ، رؤوس الأسهم الحمراء). بدون طبقة مغذية ، تنمو LTC-PGCLCs كخلايا متناثرة مع القليل من علامات الالتصاق بين الخلايا ، حتى عندما تكون كثافة الخلية عالية (الشكل 3). يحافظ كل LTC-PGCLC على التشكل الأصلي ل PGCLC البشري المعزول حديثا ، مما يظهر علامات الحركة الخلوية النشطة. عندما تظهر الخلايا المنحرفة عن الخصائص المورفولوجية الشبيهة ب PGC (الشكل 2) ، غالبا ما يؤدي إثراء PGCLCs عن طريق تقنية الالتصاق التفاضلي المتكرر إلى تحسين جودة الثقافة. إذا استمرت الخلايا الشاذة ، فقد يساعد إثراء FACS العرضي ل PGCLCs كخلايا وضعية CD38.
حدد منشور سابق PGCLCs البشرية على أنها خلايا إيجابية PRDM1 ، وإيجابية TFAP2C ، ولكنها سلبة SOX241. كما أنها تعبر عن POU5F1, ولكن iPSCs السلائف الخاصة بهم تعبر أيضا عن علامة تعدد القدراتهذه 41. من دواعي سرورنا أن نشجع بشدة على تأكيد الإنتاجية على مستوى الخلية المفردة وملامح تعبير العلامات لشبكات PGCLCs البشرية المتوسعة في أقرب فرص باستخدام العلامات المحفزة وراثيا ، أو التألق المناعي ، أو FACs ، أو تسلسل الحمض النووي الريبي أحادي الخلية. ومع ذلك ، بدون مثل هذه التحليلات التأكيدية ، يمكن تقدير إنتاجية وجودة PGCLCs البشرية في وجود أو عدم وجود خلايا التغذية بشكل ملائم باستخدام الفحص المجهري لتباين الطور القياسي كما هو موضح في الشكل 1 والشكل 2 والشكل 3.
أثناء الثقافة طويلة المدى ، تحافظ LTC-PGCLCs على مجموعة خلايا متجانسة تحتوي على مجموعة سكانية فرعية تتكاثر بنشاط ، كما أظهرت بيانات الحمض النووي الريبي أحادية الخلية السابقة41. يتم الحفاظ على المظهر الجانبي النسخي ل PGCLCs الأصلية إلى حد كبير ، باستثناء أن التعبير عن علامات PGCLC في المرحلة المبكرة GATA2 و GATA3 يتم فقدهبسرعة 41. مستوى مثيلة الحمض النووي العالمي في iPSCs البشرية هو حوالي 73٪, وأنه ينخفض إلى حوالي 64٪ في PGCLCs المنتجةحديثا 41. ينخفض مستوى مثيلة الحمض النووي العالمي بشكل أكبر في LTC-PGCLCs إلى حوالي 54٪ بعد 12 أسبوعا من التوسع في المختبر 41. يتم عكس معظم الخصائص النسخية والجينية ل LTC-PGCLCs البشرية تماما إلى تلك الموجودة في iPSCs الأصلية عند تحويلها إلى الخلايا الجرثومية الجنينية متعددة القدرات ، باستثناء أن العلامات اللاجينية الخاصة بالأليل في العديد من مناطق التحكم في البصمة يتم محوها في PGCLCs ولا ترجع أبدا41.
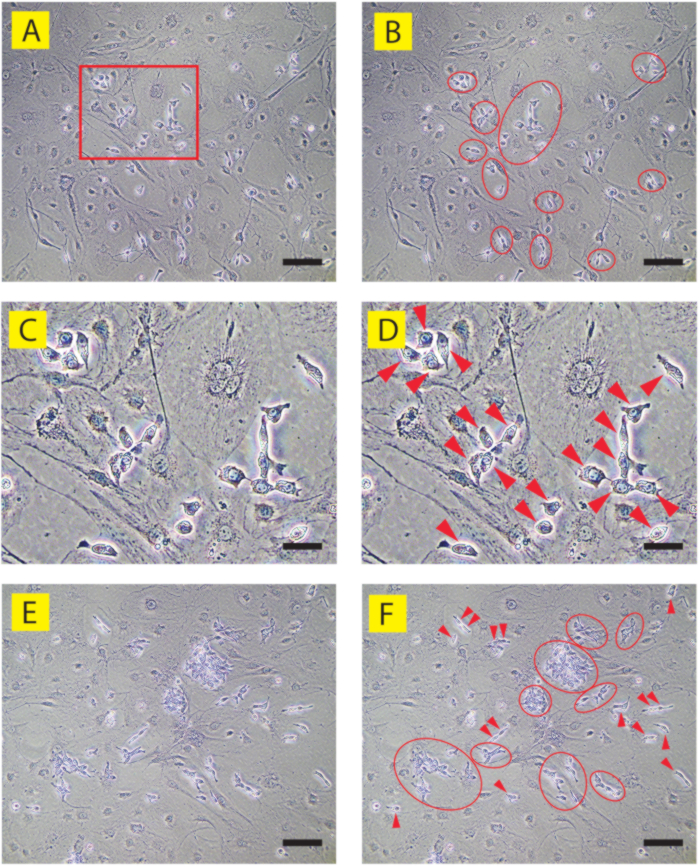
الشكل 1: صور تباين الطور ل PGCLCs البشرية الصحيحة على طبقة تغذية STO (استنساخ iPSC البشري 9A13). (أ ، ج ، ه) مشروحة في (ب ، د ، و) ، على التوالي. (م-د) ثقافة اليوم 6. يتضخم جزء من (أ) في مستطيل أحمر في (ج، د). لوحظت معظم PGCLCs كخلايا مشتتة غالبا ما تشكل مجموعات فضفاضة (أشكال بيضاوية حمراء). لا تشكل PGCLCs الفردية (رؤوس الأسهم الحمراء) اتصالا وثيقا مع بعضها البعض ويتم تحديدها بسهولة تحت الفحص المجهري للتباين الطور كخلايا بارزة من خلايا تغذية STO المتدهورة والمسطحة والمنتشرة على نطاق واسع. (ه، واو) اليوم 15 ثقافة. يتم تحديد مجموعات متعددة من PGCLCs بسهولة (أشكال بيضاوية حمراء) ، في حين أن الاتصال بين الخلايا لا يزال فضفاضا. تم العثور على بعض PGCLCs خارج المجموعات ، غالبا على شكل دوائم (رؤوس أسهم حمراء) ، مما يعكس تكاثرها النشط أثناء الهجرة بشكل عشوائي داخل وبين طبقة التغذية المتدهورة للغاية. قضبان المقياس = 50 ميكرومتر (أ ، ب ، ه ، و) أو 15 ميكرومتر (ج ، د). الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
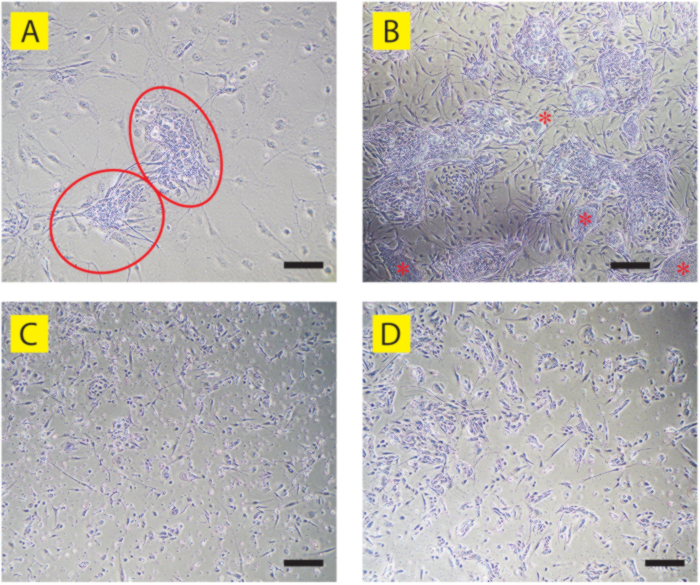
الشكل 2: صور تباين الطور ل PGCLCs البشرية التي تنحرف عن الخصائص الشبيهة ب PGC. (أ) ظهرت مجموعتان شاذتان من PGCLCs (أشكال بيضاوية حمراء) في مزرعة اليوم 9 من 9A13 PGCLCs على طبقة تغذية STO. تختلف الخلايا عن مجموعات PGCLC الصحيحة (انظر الشكل 1A-D) ، وتظهر الخلايا اتصالا قويا بين الخلايا يحجب حدود كل خلية على حدة. (ب) ثقافة اليوم 18 لثقافة PGCLC البشرية الموضحة في (أ). لوحظت مجموعات PGCLC شاذة متعددة ، يظهر بعضها مستعمرات كثيفة تشبه السلائف iPSCs البشرية (العلامات النجمية الحمراء). لاحظ أن معظم الخلايا الممدودة الشبيهة بالخلايا الليفية الموجودة بين المجموعات هي أيضا خلايا شاذة مشتقة من PGCLC ، في حين أن معظم خلايا تغذية STO تتدهور وتزعزع. (ج) LTC-hPGCLCs (استنساخ iPSC البشري B6) يظهر موتا هائلا للخلايا وأشكال شاذة على أطباق مغلفة ب BME وخالية من المغذيات. (د) LTC-hPGCLCs التي تنحرف إلى حد كبير إلى الخلايا ذات الأشكال الشاذة على أطباق خالية من المغذيات المغلفة ب BME (استنساخ iPSC البشري T548). قارن هذه LTC-hPGCLCs الشاذة مع LTC-hPGCLCs الصحيحة الموضحة في الشكل 3 ب. قضبان المقياس = 50 ميكرومتر (أ ، ب) أو 100 ميكرومتر (C ، D). الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
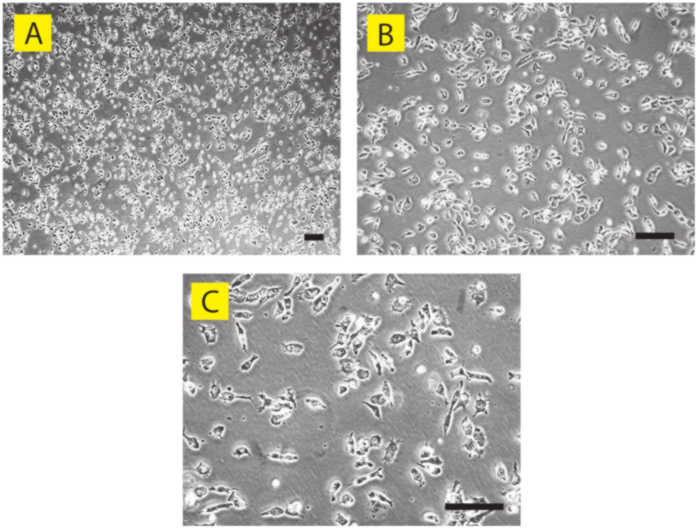
الشكل 3: صور تباين الطور ل PGCLCs البشرية الصحيحة كثقافة خالية من المغذيات (استنساخ iPSC البشري A4). يظهر اليوم 56 الثقافة الخالية من المغذيات ل LTC-PGCLCs على الأطباق المطلية ب BME في (أ) تكبير منخفض ، و (ب) متوسط ، و (ج) تكبير عالي. على الرغم من أن كثافة الخلية عالية نسبيا ، إلا أن كل PGCLC فردي لا يشكل اتصالات قريبة بين الخلايا باستثناء الخلايا التي أكملت مؤخرا انقسام الخلية. بسبب الحركية الخلوية النشطة ، تظهر بعض PGCLCs مورفولوجيا ممدودة بينما يظهر البعض الآخر مستدير الشكل. أشرطة المقياس = 50 ميكرومتر. الرجاء النقر هنا لعرض نسخة أكبر من هذا الشكل.
| PGCLC قاعدية متوسطة | |
| المكونات | حجم |
| غلاسكو MEM | 500 مل |
| استبدال مصل بالضربة القاضية (KSR) | 75 مل |
| MEM NEAA (100X) | 6 مل |
| بيروفات الصوديوم (100X) | 6 مل |
| البنسلين الستربتومايسين (100X) | 6 مل |
الجدول 1: الوسط القاعدي PGCLC. تكوين الوسط القاعدي PGCLC (593 مل).
| STO متوسط 1 | |
| المكونات | Volume |
| دولبيكو MEM | 445 مل |
| مصل العجل الجنيني | 50 مل |
| البنسلين الستربتومايسين (100X) | 5 مل |
الجدول 2: STO متوسط 1. تكوين وسط STO 1 (500 مل).
| STO متوسط 2 | |
| المكونات | حجم |
| دولبيكو MEM | 47 مل |
| مصل العجل الجنيني | 2.5 مل |
| البنسلين الستربتومايسين (100X) | 0.5 مل |
| FGF2 (200 ميكروغرام / مل) | 2.5 ميكرولتر |
الجدول 3: STO متوسط 2. تكوين وسط STO 2 ، والذي يتم استكماله ب FGF2 للنمو المعزز لخلايا STO (50 مل).
| وسائط تخزين MMC-STO | |
| المكونات | حجم |
| دولبيكو MEM | 42.5 مل |
| مصل العجل الجنيني | 5 مل |
| ثنائي ميثيل سلفوكسيد | 2.5 مل |
الجدول 4: وسيط تخزين MMC-STO. تكوين وسيط تخزين MMC-STO ، والذي يستخدم لإعداد مخزونات مجمدة من خلايا تغذية STO المعالجة ب MMC (50 مل).
المناقشة
طريقة صيانة PGCLC البشرية الموضحة في هذه المقالة بسيطة نسبيا دون الحاجة إلى أي أجهزة محددة أو مواد غير قياسية. تتطلب الطرق المنشورة سابقا لصيانة PGCLC البشرية فرزا متكررا ل FACS بسبب الانحراف الكبير للخلايا عن الحالة الشبيهة ب PGCLC38. تتطلب هذه الطرق أيضا خط خلية طبقة تغذية غير قياسي (m220-5) ، وهو غير متاح بسهولة من خلال المستودعات المتاحة للجمهوروالدولي 39،40. يؤدي إدراج FCS في وسائطهم إلى عدم اليقين بسبب الاعتماد على أداء مجموعة معينة من المصل. في المقابل ، تحصل الطريقة المعروضة حاليا بسهولة على عدة ملايين من PGCLCs البشرية ، والتي يمكن تخزينها مجمدة مع الحفاظ على قابلية عالية (> 90٪) ، دون الحاجة إلى مصل أو كواشف حيوانية أخرى. يتطلب البروتوكول خط خلية طبقة تغذية STO القياسي ، والذي يتوفر بشكل شائع من العديد من المستودعات العامة. توفر الطريقة مستوى غير مسبوق من الراحة للتعامل مع PGCLCs البشرية كما لو كانت خطوط خلايا تقليدية. سيؤدي الإمداد غير المحدود من PGCLCs البشرية التي تم تحقيقها باستخدام هذه الطريقة إلى توسيع نطاق تطبيقات PGCLC البشرية في مجالات مثل الإنتاج التجريبي للخلايا الجرثومية البشرية و / أو الأمشاج ، وتقييمات اضطرابات الخلايا الجرثومية البشرية مثل العقم (بما في ذلك محاولات تكوين الأمشاج في المختبر ) أو أورام الخلايا الجرثومية ، والتقييمات السمية للمواد السامة المحتملة للخلايا الجرثومية.
تستبعد الطريقة FCS في S-CM لتقليل ظهور أنواع غير مرغوب فيها من الخلايا من PGCLCsالبشرية 41. تميل العديد من استنساخ iPSC إلى إنتاج أنواع غير مرغوب فيها من الخلايا خلال المرحلة المعتمدة على وحدة التغذية أو بعد ذلك ، وكان على بعضها أن يمر بجولات أو ثلاث جولات من تنقية FACS ل PGCLCs. ومع ذلك ، بمجرد إنشاء ثقافة LTC-PGCLC مع أكثر من 50٪ من التقاء ، عادة ما تتضاءل ضرورة تنقية FACS. يعتمد نمو PGCLCs البشرية في المختبر بشكل صارم على وجود SCF41. إذا تضاءل معدل نمو LTC-PGCLCs ، فمن المستحسن اختبار الكثير المختلفة أو كواشف SCF الخاصة بالشركات المصنعة. نظرا لأن PGCLCs البشرية تعبر عن التيلوميراز ، فإنها لا تعاني من الشيخوخة أثناء التوسع طويل المدى في المختبر41. لقد تم استخدامه بنجاح لإنشاء LTC-PGCLCs مشتقة من iPSCs بشرية من الذكور والإناث من خلفيات عرقية مختلفة41. تشمل الأمثلة على التطبيق الناجح للطريقة المعروضة حاليا استنساخ iPSC البشري الذكور A4 و A5 (حديثي الولادة القوقازيين) ، PGP1 (البالغين القوقازيين) ، و 9A13 (البالغين اليابانيين) ، المستنسخة من iPSC الإناث ATCC-BXS0116 (القوقازية) و ATCC-BXS0115 / ACS-1029 (من أصل إسباني). يجب تحديد التطبيق العام لهذه الطريقة وعلامات التنبؤ في الدراسات المستقبلية.
تعتمد ضرورة تنقية FACS العرضية ل PGCLCs البشرية على استنساخ iPSC. في حين أن عددا قليلا من استنساخ iPSC لم يتطلب أبدا إثراء FACS بعد العزل الأولي ل PGCLCs كخلايا إيجابية CD38 ، كان لابد من إثراء بعض PGCLCs كخلايا إيجابية CD38 حتى ثلاث مرات بواسطة FACS خلال المرحلة المعتمدة على وحدة التغذية. تم تلقيح PGCLCs المخصبة ب FACS في مغذيات MMC-STO معدة حديثا. لا يلزم تخصيب FACS عادة في كل ممر بمجرد أن تبدأ PGCLCs في تضخيم مستقر على BME بدون وحدة التغذية.
بيانات مفصلة عن نسبة الخلايا التي تحافظ على الخصائص الشبيهة ب PGC مقابل الخلايا التي تنحرف إلى أنواع الخلايا غير المرغوب فيها لاستنساخ iPSC الفردي في كل مرور غير متوفرة حاليا. بشكل عام ، يتم تثبيت ثقافة LTC-hPGCLC بعد 2-4 أسابيع من الثقافة مع المرور المتكرر. عندما تميل PGCLCs البشرية إلى توليد أنواع غير مرغوب فيها من الخلايا ، فإن طريقة الالتصاق التفاضلي قد تثري بشكل فعال PGCLCs ، حيث تميل معظم الخلايا غير المرغوب فيها إلى الالتصاق بطبق المزرعة بقوة أكبر من PGCLCs. إذا لم تساعد المحاولات المتكررة للالتصاق التفاضلي في تخصيب PGCLC ، فإن إثراء FACS ل PGCLCs البشرية كخلايا إيجابية CD38 غالبا ما يزيل الخلايا غير المرغوب فيها ، وبعد ذلك ، يمكن الحفاظ على LTC-hPGCLC النقي باستخدام طريقة الالتصاق التفاضلي فقط. كان إنشاء ثقافة طويلة الأجل من PGCLCs البشرية التي تم إنشاؤها باستخدام الطريقة ثنائية الأبعاد التي وصفها Overeem et al. أمرا صعبا في بعض الأحيان. ومع ذلك ، فإن نفس PGCLCs البشرية التي اكتسبت مقاومة لموت الخلايا المبرمج من خلال خروج كريسبر بالضربة القاضية للجينات المؤيدة لموت الخلايا المبرمج تم توسيعها بسهولة إلى LTC-hPGCLCs. يجب فحص تفاصيل توافق هذه الطريقة مع كل iPSCs و PGCLCs بشرية فردية في الدراسات المستقبلية.
في حين أن خلايا طبقة تغذية STO المعالجة ب MMC تدعم في البداية بقاء وتكاثر PGCLCs البشرية المعزولة حديثا ، فإن PGCLCs سريعة الانتشار تتوسع في المختبر بدون طبقة تغذية طالما أنها مدعومة بالوسط المكيف STO وطلاء BME للأطباق. تتمثل الفائدة الفريدة للطريقة المعروضة حاليا على الأساليب الأخرى في القدرة على إنشاء LTC-hPGCLCs كثقافة خالية من المغذيات. تظهر خلايا طبقة التغذية MMC-STO علامات أولية للتدهور في وسط S-CM بعد 5-6 أيام من الثقافة. بحلول اليوم 6-7 (الشكل 1A-D) ، تظهر طبقة التغذية ضررا متواضعا ، والذي يصبح أكثر وضوحا بحلول اليوم 14-15 (الشكل 1E ، F). في حالة عدم وجود الخلايا المغذية ، عادة ما يكون معدل بقاء PGCLCs البشرية المعزولة حديثا منخفضا ، ويرجع ذلك على ما يبدو إلى ضعف كفاءتها في الالتصاق بقاع أطباق زراعة الخلايا. من المتوقع أن بروتينات المصفوفة خارج الخلية التي ترسبها خلايا MMC-STO تسهل التصاق وبقاء PGCLCs حتى بعد تدهور خلايا MMC-STO. بمجرد أن يصبح عدد PGCLCs البشرية كبيرا بما يكفي لتشكيل مجموعات مرئية بحلول اليوم 14-15 ، قد تكون المصفوفة خارج الخلية المودعة بواسطة PGCLCs نفسها كافية لدعم بقائها وانتشارها. دعما لهذا الافتراض ، غالبا ما يؤدي تلقيح PGCLCs البشرية المعزولة حديثا بكثافة عالية (على سبيل المثال ، 100,000 خلية في بئر من صفيحة مكونة من 12 بئرا) إلى الآبار الخالية من المغذيات والمغلفة ب BME إلى التوسع الناجح لثقافة LTC-hPGCLC. من ناحية أخرى ، فإن استخدام الوسيط المكيف MMC-STO مطلوب للغاية في جميع أنحاء ثقافة PGCLC البشرية ، مع التأكيد على أهمية التكييف المستمر بواسطة خلايا MMC-STO.
من المهم الحفاظ على كثافة عالية نسبيا من ثقافة LTC-PGCLC على BME لقمع ظهور أنواع غير مرغوب فيها من الخلايا. يوصى بتمرير PGCLCs عند أكثر من 25٪ من التقاء التقاء. يزيد تلقيح PGCLCs بكثافة أقل من خطر إنتاج خلايا غير مرغوب فيها. نظرا لأن وقت مضاعفة عدد سكان PGCLCs البشري هو حوالي 4.5 يوما41 ، فإن المرور الأسبوعي الروتيني عادة ما يكون كافيا للحفاظ على الثقافة طويلة الأجل. إذا انحرف جزء كبير من PGCLCs عن خصائصها الشبيهة ب PGC ، وإذا كانت تقنية الالتصاق التفاضلي أو FACS غير كافية لإزالة الخلايا غير المرغوب فيها ، ففكر في تلقيح طبقة تغذية MMC-STO للآبار المغلفة ب BME بدلا من طلاء الجيلاتين ، و / أو إطالة زراعة خلايا MMC-STO إلى 3 أو 4 أيام قبل تلقيح PGCLCs.
تختلف خصائص التعبير المورفولوجية والعلامة بين أنواع الخلايا غير المرغوب فيها اختلافا كبيرا ، على الرغم من أنه يمكن تحديدها بسهولة تحت الفحص المجهري القياسي لتباين الطور (الشكل 2). تنحرف الخلايا التي تظهر خصائص نمو مجمعة أو مظهر مسطح عن الخصائص الشبيهة ب PGC. عادة ما يتضاءل التعبير عن علامات PGC القياسية مثل PRDM1 أو TFAP2C في مثل هذه الخلايا غير المرغوب فيها ، على الرغم من عدم توفر معايير واضحة حاليا لتمييز مجموعة الخلايا غير المرغوب فيها عن مجموعة الخلايا الشبيهة ب PGC بشكل مقنع ، والتي يمكن تأكيدها عن طريق تلطيخ التألق المناعي أو FACS أو تسلسل الحمض النووي الريبي أحادي الخلية. اعتبارا من اليوم ، فإن هويات أو أهمية أنواع الخلايا غير PGC التي تظهر أثناء توسع LTC-hPGCLCs غير معروفة.
على الرغم من أن الطريقة المعروضة في هذه المقالة تستخدم خلايا طبقة تغذية STO ، إلا أنه يمكن أيضا استخدام خلايا SNL 76/7 لإنتاج الوسط المكيف وطبقة التغذية. تمكنت بعض مزارع PGCLC من التكيف مع الثقافة طويلة المدى دون المرور بالثقافة المعتمدة على المغذي ، خاصة عند بدء المزرعة بحجم لقاح كبير (>100,000 خلية). من ناحية أخرى ، قد يكون إنشاء ثقافة LTC-PGCLC أمرا صعبا عندما يكون حجم البدء أصغر من 10,000 خلية. على الرغم من أن المكونات الرئيسية للوسيط المشروط STO قد تم وصفها مسبقا ، إلا أن المكونات التي تدعم توسع PGCLC على المدى الطويل لم يتم تحديدهابعد 44.
الإفصاحات
ليس لدى المؤلفين تضارب في المصالح للإفصاح عنها.
شكر وتقدير
تم دعم هذا العمل من خلال منح المعاهد الوطنية للصحة R01ES035401 و R21ES034468 و R21HD110839 و R21DA059789 و R21CA290650 إلى TS. TS هي أيضا حاصلة على جائزة فرعية من منحة مؤسسة جون تمبلتون 63299 (PI ، جون ماكاري ، جامعة تكساس ، سان أنطونيو). تم دعم جزء من الدراسة المقدمة أيضا من قبل صندوق جيمس باتريك ستو (PI ، فيليب سايلور ، مستشفى ماساتشوستس العام).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 6-لوحات زراعة الخلايا | كورنينج | 3506 | |
| أكوتيز | تقنيات الخلايا المبتكرة | AT104 | يخزن في -20 درجة ؛ C لمدة 6 أشهر. |
| أطباق بلاستيكية 10 سم معالجة بزراعة الخلايا (أطباق P10) | كورنينج | 353003 | |
| أطباق بلاستيكية 15 سم معالجة بزراعة الخلايا (أطباق P15) | كورنينج | 353025 | |
| قارورة مبردة ؛ | ميليبور سيجما | CLS431417 | |
| CryoStor CS10 | تقنيات الخلايا الجذعية | 7930 | يخزن في درجة حرارة 4 درجة مئوية. |
| ثنائي ميثيل سلفوكسيد | فيشر العلمية | BP231-1 | يحفظ في درجة حرارة الغرفة. درجة زراعة الخلايا. |
| دولبيكو. s محلول ملحي مخزن بالفوسفات (خال من الكالسيوم / المغنيسيوم) (DPBS) | جيبكو | 14190144 | يحفظ في درجة حرارة الغرفة. درجة زراعة الخلايا. |
| الحد الأدنى من الوسط الأساسي من Dulbecco (MEM من Dulbecco) | كورنينج | 10-013-سم | يحفظ في درجة حرارة 4 درجة مئوية. nاستخدم وسط يحتوي على 4.5 جم / لتر من الجلوكوز و 1X L-glutamine و 1X بيروفات الصوديوم. |
| مصل العجل الجنيني | مصل CPS | إف بي إس-500 | يخزن في -20 درجة ؛ C لمدة 12 شهرا. |
| الجيلاتين | تقنيات الخلايا الجذعية | 7903 | 0.1٪ في الماء. عقيم. |
| ميمينوم اسنشال ميمينوم ميديل من غلاسكو (MEM في غلاسكو) | جيبكو | 11710-035 | يخزن في درجة حرارة 4 درجة مئوية. |
| عامل نمو الخلايا الليفية المؤتلفة البشرية 2 (FGF2) | بيبروتك | 100-18 ب | يخزن عند -80 درجة ؛ C لمدة 3 أشهر. |
| عامل الخلايا الجذعية المؤتلف البشري (SCF) | بيبروتك | 300-07 | أعد التكوين في الماء باتباع تعليمات الشركة المصنعة. يخزن عند -80 درجة ؛ C لمدة 3 أشهر. |
| استبدال مصل الضربة القاضيةq | جيبكو | 10828-028 | يخزن في -20 درجة ؛ C لمدة 6 أشهر. |
| Matrigel (الخلايا الجذعية الجنينية البشرية مؤهلة) | كورنينج | 354277 | |
| الحد الأدنى من الأحماض الأمينية الأساسية الأساسية (MEM NEAA) | جيبكو | 11140-050 | يخزن في درجة حرارة 4 درجة مئوية. |
| ميتومايسين-سي (10 ملي في الماء) | ميليبور سيجما | م 5353 | قم بإذابة الميتومايسين-سي (MMC) في الماء وتعقيم الفلتر (حجم المسام 0.22 ملليمتر). تخزين 100 مل من الاقتباس عند -20 درجة ؛ C لمدة 6 أشهر. لإذابة MMC المجمد ، قم بإذابة البلورات الأرجوانية في حمام الماء الساخن (>60° ج) إلى محلول أرجواني داكن. |
| البنسلين الستربتومايسين (100X) | جيبكو | 15140-122 | يخزن في درجة حرارة 4 درجة مئوية. |
| أنابيب الطرد المركزي البلاستيكية (15 مل) | كورنينج | 352196 | |
| أنابيب الطرد المركزي البلاستيكية (50 مل) | كورنينج | 352070 | |
| بيروفات الصوديوم (100X) | جيبكو | 11360-070 | يخزن في درجة حرارة 4 درجة مئوية. |
| الخلايا الليفية الجنينية للفأر STO ؛ | ATCC | CRL-1503 | |
| أزرق تريبان (0.4٪) | فيشر العلمية | تي 10282 | يحفظ في درجة حرارة الغرفة. |
| TrypLE Express | جيبكو | 12604-013 | يحفظ في درجة حرارة الغرفة. |
| Y-27632 (10 ملي مولار في الماء) | توكريس | 1254 | قم بإذابة Y-27362 ، وهو مثبط ROCK ، في الماء حتى 10 ملي مولار ومعقم بالفلتر (حجم مسام 0.22 ملليمتر). تخزين 100 مل من الاقتباس عند -20 درجة ؛ C لمدة 6 أشهر. |
المراجع
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
إعادة الطباعة والأذونات
استكشف المزيد من المقالات
تم نشر هذه المقالة
الفيديو قريباً