تعمل هذه الدراسة على تحسين طريقة لاستخلاص الـ RNA تعتمد على الفينول الساخن لبكتيريا Mycobacterium، مما ينتج RNA عالي الجودة مناسب للتحليلات الترانسكريبتومية. وعند مقارنتها بطريقتي TRIzol و RNeasy تحت ظروف متطابقة، وفرت هذه الطريقة إنتاجية أعلى، وسلامة مماثلة، وكفاءة أفضل من حيث التكلفة، مما يجعلها بديلًا عمليًا لدراسات التعبير الجيني واسعة النطاق.
مقالة منهجية
استخلاص الحمض النووي الريبوزي (RNA) المُحسَّن القائم على الفينول الساخن من البكتيريا الميتاكوندريا: نهج قوي لتحليل موثوق للتعبير الجيني
176 مشاهدة
⸱
سبتمبر 11, 2026
في هذه المقالة
ملخص
الملخص
تظل Mycobacterium tuberculosis (Mtb) تهديداً صحياً عالمياً رئيسياً، مما يؤكد الحاجة إلى دراسات ترانسكريبتومية موثوقة لفهم بيولوجيتها وآليات مقاومتها للأدوية. وتعتمد هذه التحليلات على الحصول على RNA عالي الجودة وبإنتاجية عالية. ورغم توفر عدة طرق لاستخلاص RNA، فإن العديد منها يتطلب كواشف باهظة الثمن، أو أحجام زراعة كبيرة، أو معدات متخصصة، مما يحد من ملاءمتها للدراسات واسعة النطاق، لا سيما في البيئات محدودة الموارد. وفيما يلي، يتم عرض طريقة محسنة لاستخلاص RNA تعتمد على الفينول الساخن مصممة خصيصاً للمتفطرات. تستخدم هذه الطريقة الحد الأدنى من حجم المزرعة وكواشف متاحة بشكل شائع لإنتاج RNA عالي الجودة باستمرار، وهو مناسب لتطبيقات الترانسكريبتوميك عالية الإنتاجية. وقد تم تقييم كمية وسلامة RNA عن طريق الرحلان الكهربائي للهلام وتحليل سلامة RNA (RIN)، وتم تأكيد ملاءمته للتطبيقات اللاحقة بواسطة qPCR و Qubit 4. ولمعايرة أداء الطريقة المحسنة، تم إجراء استخلاص متوازٍ لـ RNA باستخدام TRIzol و RNeasy تحت ظروف تجريبية متطابقة، بما في ذلك نفس أنواع Mycobacterium، وحجم المزرعة، ومرحلة النمو (اللوغاريتمية والثابتة)، وظروف التحلل. وقد أتاح ذلك مقارنة مباشرة من حيث الإنتاجية والجودة والجدوى والتكلفة. وأظهرت طريقة الفينول الساخن المحسنة إنتاجية وجودة RNA مماثلة أو محسنة مع تقليل تكلفة الكواشف والاعتماد على المعدات المتخصصة بشكل كبير. ونظراً لكفاءتها وقابلية تكرارها وتكلفتها الميسورة، يوفر هذا البروتوكول بديلاً عملياً لدراسات التعبير الجيني والترانسكريبتوميك واسعة النطاق في Mtb وأنواع المتفطرات الأخرى.
المقدمة
M. tuberculosis (Mtb)، وهو العامل المسبب لمرض السل (TB)، لا يزال السبب الرئيسي للوفاة الناجمة عن مسبب مرض معدٍ واحد، متجاوزاً بذلك فيروس نقص المناعة البشرية/الإيدز (HIV/AIDS). في عام 2024، تسبب السل في وفاة ما يقرب من 1.3 مليون شخص في جميع أنحاء العالم1. ويزداد هذا العبء تفاقماً بسبب ارتفاع انتشار السلالات المقاومة للأدوية المتعددة (MDR) والسلالات شديدة المقاومة للأدوية (XDR). وبناءً على ذلك، هناك حاجة ملحة لفهم الأساس الجزيئي لإمراضية السل وتحديد أهداف علاجية جديدة2.
أصبح التوصيف النسخي لبكتيريا Mtb أداة مهمة لتوضيح العناصر الوظيفية المشاركة في التفاعلات بين المضيف والممرض3، والتكيف مع الإجهاد البيئي4، والآليات الكامنة وراء مقاومة الأدوية5. وقد أدت المنهجيات المتقدمة مثل تفاعل البوليميراز المتسلسل في الوقت الحقيقي (real-time PCR)، والمصفوفات الدقيقة (microarrays)، وتسلسل الحمض النووي الريبي (RNA-seq) إلى تعزيز القدرة على تحليل ترانسكريبتوم المتفطرات بشكل كبير6. ومع ذلك، يعتمد نجاح هذه الطرق بشكل كبير على توفر حمض RNA عالي الجودة، والذي يعتمد بدوره على التحلل الخلوي الفعال أثناء عملية الاستخلاص. ويجعل جدار الخلية المعقد المكون من الميكوليل-أرابينوجالاكتان-ببتيدوجليكان في بكتيريا Mtb استخلاص RNA صعباً بشكل خاص7. وغالباً ما تتطلب تقنيات التحلل الموجودة، بما في ذلك التحلل المائي الإنزيمي8، والسونيكيشن (sonication)9، والضرب بالخرز (bead-beating)10، معدات مكلفة وأحجام مستنبتات كبيرة، مما يحد من عمليتها في العديد من مختبرات المستوى الثالث من السلامة البيولوجية (BSL-3). بالإضافة إلى ذلك، يتطلب معدل النمو البطيء لبكتيريا Mtb فترات استنبات طويلة للحصول على كتلة حيوية كافية11.
وللتغلب على هذه القيود، تم تطوير طريقة محسنة لاستخلاص RNA تعتمد على الفينول الساخن (Hot Phenol)، وتتميز بأنها سريعة واقتصادية. وباستخدام 3 mL فقط من المزرعة في مرحلة النمو اللوغاريتمي المتوسط، تعطي هذه الطريقة من 45–60 µg من RNA عالي الجودة والمناسب للتحليلات النسخية اللاحقة. ويتم تحقيق تحلل الخلايا باستخدام مطحنة أنسجة يدوية مدمجة وكواشف متاحة بسهولة، مما يلغي الحاجة إلى أجهزة باهظة الثمن. ورغم أنه تم الإبلاغ عن طريقة الفينول الساخن سابقاً11,12، إلا أن طريقة الفينول الساخن المحسنة تعزز من سهولة الاستخدام والجدوى الاقتصادية وإنتاجية RNA. وقد أُجري التحسين باستخدام M. smegmatis mc2155 (Msmeg) وتم التحقق من نجاحها باستخدام Mtb H37Rv.
البروتوكول
الكواشف والمعدات المستخدمة مدرجة في جدول المواد.
1. استزراع الـ Mycobacterium
- قم بتلقيح 1mL من المخزون الجليسرولي لـ Msmeg أو Mtb في 10 mL من وسط Middlebrook 7H9 المكمل بـ 0.2% glycerol و0.05% Tween 80 و10% ADC عند 37 °C مع الرج بسرعة 150 rpm حتى تصل قيمة OD إلى 1–1.5.
- قم بتنمية المزرعة الثانوية عن طريق إضافة 1% من المزرعة الأولية في 10 mL من أوساط 7H9 حتى مرحلة النمو اللوغاريتمي المتوسط، OD600nm = 0.6–0.7.
- قم بتقسيم المزارع إلى حصص بحجم 3 mL ثم قم بطردها مركزياً عند 2000 x g لمدة 5 min في درجة حرارة الغرفة (23–25 °C).
- قم بتخزين الرواسب عند -80 °C حتى استخلاص RNA.
تنبيه: بالنسبة لمزارع Mtb، اتبع إرشادات BSL3 المناسبة وقم بتعطيل الرواسب حرارياً عند 95 ˚C لمدة 20–25 min.
ملاحظة: يوضح الشكل 1 المخطط الانسيابي للخطوات الأساسية المتبعة أثناء استخلاص RNA بطريقة الفينول الساخن (Hot Phenol).
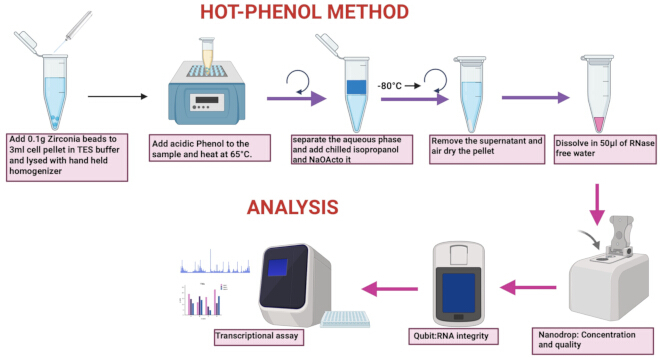
الشكل 1: تمثيل تخطيطي لطريقة الفينول الساخن والتحليل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
2. استخلاص الـ RNA
- طريقة الفينول الساخن (طريقة HP)
- أضف 200 µL من محلول TES المنظم (100 mM Tris-HCl، pH 8.0؛ 5 mM EDTA، pH 8.0؛ 0.1 M NaCl؛ % SDS؛ 1% β-mercaptoethanol) إلى كتلة الخلايا وأعد تعليق الكتلة عن طريق الرج الدوامي (vortexing).
- أضف ما يقرب من 0.1 g من حبيبات السيليكا بحجم 0.1 mm إلى العينة. استخدم مطحنة أنسجة محمولة يدويًا لمدة 10–15 ثانية حتى تذوب الكتلة تمامًا على الثلج. كرر هذه الخطوة لدورتين إضافيتين، يتبع ذلك تجميد سريع في النيتروجين السائل بعد كل تكرار.
- أو استخدم جهاز تكسير بالخرز (bead ruptor) مكتبي عالي السرعة لمدة دقيقة واحدة عند إعداد السرعة 5 (5.0 m/s) في درجة حرارة الغرفة. كرر هذه الخطوة لـ 3 دورات وحضّن العينة على الثلج لمنع التسخين بعد كل دورة.
ملحوظة: كرر عملية تحلل خلايا Mtb لـ 6–8 دورات (دقيقة واحدة لكل دورة) باستخدام إما مطحنة أنسجة محمولة يدويًا أو جهاز تكسير بالخرز، مع التبريد المتقطع على الثلج بعد كل دورة. استخدم مياهًا معالجة بـ DEPC (ثنائي إيثيل بيرو carbonate) لتحضير جميع المحاليل المنظمة والكواشف اللازمة لاستخلاص RNA. - أضف 200 µL إضافية من محلول TES المنظم (يتم تسخينه مسبقًا إلى 65 °C) إلى كل عينة ليصل الحجم الإجمالي إلى 400 µL. أضف إلى كل عينة 200 µL من الفينول الحمضي (فينول متوازن مع محلول سترات منظم بتركيز 100 mM، pH 4.5) و 200 µL من الكلوروفورم (امزج الفينول الحمضي والكلوروفورم بنسبة متساوية قبل إضافتهما إلى العينة).
- حضّن العينة عند 65 °C على كتلة تسخين مع الرج بسرعة 900 rpm لمدة 30 دقيقة، ثم قم بالطرد المركزي بسرعة 12000 x g لمدة 15 دقيقة في درجة حرارة الغرفة. تأكد من حدوث فصل صحيح للأطوار بعد الطرد المركزي (سيُلاحظ وجود طور مائي علوي صافٍ يحتوي على RNA، وطور بيني متميز من DNA، وطور عضوي سفلي يحتوي على البروتينات والدهون).
- أزل الطبقة العليا من الطور المائي وانقلها إلى أنبوب طرد مركزي دقيق جديد سعة 1.5 mL. أضف حجمًا مساويًا من الفينول الحمضي: الكلوروفورم مرة أخرى. قم بالطرد المركزي بسرعة 12,000 x g لمدة 15 دقيقة في درجة حرارة الغرفة. تأكد من حدوث فصل صحيح للأطوار.
- انقل الطبقة المائية العليا إلى أنبوب طرد مركزي دقيق جديد سعة 1.5 mL، ثم أضف 30 µL من محلول خلات الصوديوم المنظم بتركيز 3 M، pH 5.3، و 240 µL من الإيزوبروبانول المبرد. حضّن عند −80 °C لمدة تتراوح من 30 دقيقة إلى ساعة واحدة.
ملحوظة: يمكن تخزين أنبوب الطرد المركزي الدقيق طوال الليل عند -80 °C في هذه الخطوة. أغلق أنبوب الطرد المركزي الدقيق بعدة طبقات من البارافيلم لمنعه من الانفتاح عند 65 °C أثناء التحضين.
تنبيه: الفينول والكلوروفورم مواد كيميائية خطرة؛ لذا يجب اتباع إجراءات الوقاية الشخصية المناسبة (PPE)، وضوابط الهندسة مثل خزانات سحب الغازات، وإجراءات محددة للتخلص من النفايات. - قم بالطرد المركزي بسرعة 12,000 x g لمدة ساعة واحدة في درجة حرارة الغرفة. تأكد من تكون الكتلة وأزل السائل الطافي بعناية دون تحريك الكتلة.
- أعد تعليق الكتلة في 1 mL من الإيثانول بتركيز 75% وقم بالطرد المركزي بسرعة 12,000 x g لمدة دقيقة واحدة في درجة حرارة الغرفة. نفذ هذه الخطوة مرتين ثم جفف الكتلة بالهواء.
- أعد تعليق الكتلة في 50 µL من الماء الخالي من النوكلياز.
ملحوظة: لإذابة RNA، حضّنه في ماء خالٍ من RNase لمدة 10–30 دقيقة في درجة حرارة الغرفة.
- طريقة TRIzol
- أضف 200 µL من كاشف TRIzol إلى كتلة الخلايا.
تنبيه: TRIzol مادة كيميائية خطرة؛ لذا يجب اتباع إجراءات الوقاية الشخصية المناسبة (PPE)، وضوابط الهندسة مثل خزانات سحب الغازات، وإجراءات محددة للتخلص من النفايات. - اتبع طريقة تحلل الخلايا كما في الخطوات 2.1.2 - 2.1.3..
- أضف 200 µL إضافية من كاشف TRIzol، يتبعها 200 µL من الكلوروفورم، ثم قم بالرج الدوامي لمدة دقيقة واحدة. قم بالطرد المركزي بسرعة 13,400 x g لمدة 15 دقيقة عند 4 °C. تأكد من الفصل الصحيح للأطوار بعد الطرد المركزي.
- انقل الطور المائي بعناية إلى أنبوب طرد مركزي دقيق جديد سعة 1.5 mL.
- قم بترسيب RNA عن طريق إضافة 500 µL من الإيزوبروبانول إلى الطور المائي والتحضين عند −80 °C لمدة تتراوح من 30 دقيقة إلى ساعة واحدة.
- قم بترسيب RNA عن طريق الطرد المركزي بسرعة 15,000 x g لمدة 20 دقيقة عند 4 °C. راقب الكتلة بعناية وأزل السائل الطافي دون تحريك الكتلة.
- أعد تعليق الكتلة باستخدام 1 mL من الإيثانول بتركيز 75% وقم بالطرد المركزي بسرعة 13,400 x g لمدة دقيقة واحدة عند 4 °C. كرر هذه الخطوة مرتين، وجفف الكتلة بالهواء لمدة 30 دقيقة في درجة حرارة الغرفة، ثم أعد تعليقها في 50 µL من الماء الخالي من النوكلياز.
- أضف 200 µL من كاشف TRIzol إلى كتلة الخلايا.
- طريقة مجموعة استخلاص RNA المتوفرة تجاريًا
- أعد تعليق كتلة الخلايا في 200 µL من محلول إعادة التعليق المنظم (الموفر في المجموعة).
- اتبع طريقة تحلل الخلايا كما في الخطوات 2.1.2 - 2.1.3.
- أجرِ التجربة اللاحقة وفقًا لتعليمات الشركة المصنعة.
3. المعالجة بإنزيم DNase، والتقدير الكمي، والتصور
- لإزالة التلوث بالحمض النووي الريبوزي منقوص الأكسجين (gDNA)، أضف 1 µL من DNase I (10units) و 5 µL من RDD buffer (1x) إلى كل عينة RNA وحضنها في درجة حرارة الغرفة لمدة 30 دقيقة.
- قم بقياس كمية عينة RNA طيفياً باستخدام Nanodrop وقياس سلامة RNA باستخدام Qubit4. تكون قيمة RIN المقبولة بين 7.5 -10، والقيم المقبولة لـ A260/A280 و A260/A230 في النطاق 1.8–2.0 و 2.0–2.2 على التوالي.
- قم بمعاينة RNA على هلام أجاروز بتركيز 1% باستخدام 1X RNA loading dye.
4. تخليق cDNA وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (quantitative real-time PCR)
- قم بإعداد تفاعل بحجم 20 µL لتحضير cDNA باستخدام طقم cDNA Reverse Transcription و1 µg من RNA، وذلك باتباع تعليمات الشركة المصنعة في جهاز الدوري الحراري (thermal cycler).
- قم بإعداد تفاعل PCR في الوقت الحقيقي (real-time PCR) بحجم 10 µL باستخدام 50 ng من cDNA، و0.4 µM من كل بادئ (primer)، وSYBR وفقاً لتعليمات الشركة المصنعة. ثم قم بتشغيل العينة في جهاز Real-Time PCR Thermal cycler.
ملاحظة: تم استخدام البادئات التالية لتحليل qPCR:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. التحليل الإحصائي
- أجرِ اختبار t-test للطالب باستخدام جميع المكررات البيولوجية عبر برنامج Graph Pad Prism، واعتُبرت القيمة P ≤ 0.05 ذات دلالة إحصائية. تمثل أشرطة الخطأ الخطأ المعياري لثلاث مكررات بيولوجية على الأقل.
النتائج
جودة وعائد الـ RNA
تم تقييم جودة وكمية الـ RNA عن طريق الفصل الكهربائي لهلام الأغاروز (الشكل 2). لوحظت حزم حادة ومتميزة تقابل 23S و 16S rRNA لجميع طرق الاستخلاص، مما يؤكد نجاح عزل الـ RNA الكلي. وأظهرت طريقتا الفينول الساخن وTRIzol ثلاث حزم واضحة تمثل 23S (~2900 bp) و 16S (~1500 bp) و 5S rRNA (~120 bp)، مما يشير إلى أن الـ RNA سليم وعالي الجودة. في المقابل، أظهرت طريقة الطقم القائمة على الأعمدة حزم 23S و 16S فقط، مع غياب حزمة 5S rRNA أو كونها دون مستوى الكشف، ويرجع ذلك على الأرجح إلى الفقد التفضيلي لجزيئات الـ RNA الصغيرة أثناء التنقية بالأعمدة. ومن الناحية الكمية، أنتجت طريقة الفينول الساخن كمية RNA تزيد بمقدار 1.5-2 ضعف مقارنة بطريقتي TRIzol و RNeasy على التوالي (الشكل 2A,C). وكان متوسط العائد حوالي 60 µg للفينول الساخن، و ~45 µg لـ TRIzol، و ~30 µg لـ RNeasy، حيث يمثل الأخير عائداً أقل بنسبة ~50% من الفينول الساخن. ورغم الاختلافات في العائد، كانت سلامة الـ RNA ونقاؤه متقاربة عبر جميع الطرق (الشكل 2D,E).
لتقييم كفاءة نهج التحلل، تم استخلاص الـ RNA أيضًا باستخدام جهاز تحطيم الخرز (bead ruptor). وقد تم الحصول على عوائد وجودة وسلامة مماثلة، مما يثبت إمكانية تحقيق تحلل فعال باستخدام مطحنة أنسجة يدوية بسيطة دون الاعتماد على معدات متخصصة مثل جهاز تحطيم/خض الخرز (الشكل 2B، F–H).
نظرًا لأن Mtb أكثر مقاومة للتحلل من Msmeg، فقد تحققنا بشكل أكبر من طريقة الفينول الساخن (Hot Phenol) المحسّنة باستخدام سلالة Mtb H37Rv. أدى تحلل الخلايا باستخدام كل من طاحنة الأنسجة ومحطم الخرز إلى الحصول على RNA بإنتاجية وجودة وسلامة جيدة (الشكل 3A–D)، مما يؤكد متانة هذه الطريقة. وعلى الرغم من أن استخلاص RNA باستخدام طاحنة الأنسجة اليدوية أعطى إنتاجية أقل (~35–45 µg/3 mL من المزرعة) مقارنة بمحطم الخرز (50–60 µg/3 mL)، إلا أنه وُجد أن الفرق ليس ذا دلالة إحصائية، كما كانت الكمية ضمن النطاق المقبول والكافي لدراسات التعبير الجيني واسعة النطاق. وقد كُررت جميع عمليات استخلاص RNA عدة مرات، وتم عرض جميع المكررات البيولوجية المستقلة. كما أُجري تحليل قياس الكثافة على صور الهلام، مما يؤكد بشكل أكبر الفروق الإحصائية في إنتاجية RNA عبر الطرق المختلفة، حيث أعطى الفينول الساخن (Hot Phenol) أعلى إنتاجية (الشكل التكميلي 1A–D).
نقاء وسلامة الـ RNA
أدت جميع الطرق إلى الحصول على RNA بنسب A260/A280 مقبولة تقارب 2.0، مما يشير إلى الحد الأدنى من التلوث البروتيني (الشكل 2D). كانت سلامة الـ RNA (RIN) متقاربة في جميع الطرق، حيث تراوحت القيمة من 7.5 إلى 10 (الشكل 2D–H، الشكل التكميلي 2، اللوحة السفلية). ويشير هذا إلى جودة وسلامة جيدة والحد الأدنى من التحلل.
تحليل PCR الكمي للتحقق من جودة الـ RNA
لتقييم مدى ملاءمة الحمض النووي الريبوزي (RNA) المستخلص بكل طريقة لإجراء دراسات التعبير الجيني اللاحقة، تم إجراء تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR). وقد درسنا التعبير الجيني لجين التدبير المنزلي في بكتيريا Msmeg، mysA (MSMEG 2758)، ومنظمين نسخيين، sigE (MSMEG 5072) و سيج اتش (sigH) (MSMEG 1914)، باستخدام كميات متكافئة من الحمض النووي الريبي (RNA) المدخل. وتعكس قيم عتبة الدورة (Ct) التي تم الحصول عليها الوفرة النسبية للحمض النووي الريبي السليم والقابل للتضخيم في كل عينة. وكما هو موضح في (الشكل 2I)، وأعطى الحمض النووي الريبوزي (RNA) المستخلص باستخدام الفينول الساخن وTRIzol قيم Ct متقاربة في نطاق يتراوح تقريبًا بين 22 و25، مما يعكس سلامة أعلى للحمض النووي الريبوزي وتوافقًا أكبر مع عملية النسخ العكسي والتضخيم. وفي حين أظهرت طريقة الطقم قيم Ct أعلى قليلاً (~27-30)، مما يشير إلى مستويات أقل من النسخ القابلة للكشف. وأظهر تحليل منحنى الانصهار تضخيمًا محددًا لـ mysA, sigE, و sigH الجينات، والتي توضح خصوصية وكفاءة تفاعل البوليميراز المتسلسل الكمي (qPCR) (الشكل التكميلي 2، اللوحة العلوية). كما أظهر تحليل qPCR باستخدام جينات Mtb قيم Ct مقبولة (حوالي 20-25)، مما يؤكد ملاءمتها لدراسات التعبير الجيني اللاحقة (الشكل 3E).
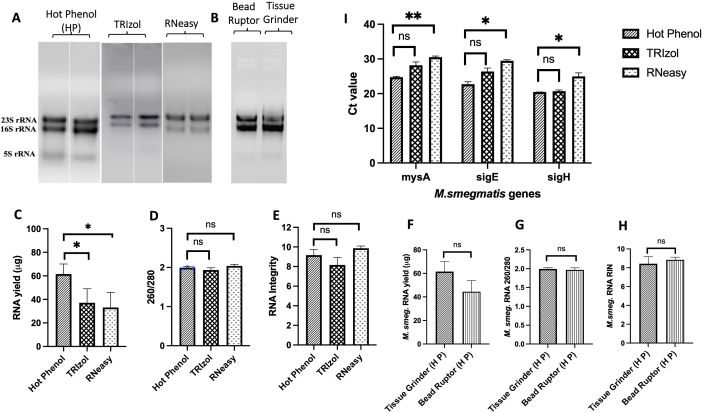
الشكل 2: مقارنة بين طرق استخلاص RNA لبكتيريا Mycobacterium. (A) الرحلان الكهربائي بهلام الأجاروز يوضح إجمالي RNA المستخلص باستخدام طرق Hot Phenol وTRIzol وRNeasy. تظهر حزم 23S و16S rRNA متميزة في جميع العينات، مما يشير إلى سلامة الـ RNA. (B) الرحلان الكهربائي بهلام الأجاروز يوضح إجمالي RNA المستخلص باستخدام Hot Phenol عبر طرق تحلل مختلفة، وهي bead ruptor والمطحنة اليدوية للأنسجة. (C) إنتاجية إجمالي RNA، حيث تظهر أعلى إنتاجية من طريقة Hot Phenol، تليها طريقة TRIzol ثم طريقة الطقم (kit). (D) تم تقييم نقاء RNA بواسطة نسب A260/A280، حيث أعطت جميع الطرق قيمًا تقارب ~2.0، مما يشير إلى الحد الأدنى من التلوث البروتيني. (E) رقم سلامة RNA (RIN) يظهر سلامة متقاربة. (F–H) مقارنة بين إنتاجية RNA، ونسبة 260/280، وسلامة RNA بين العينات التي حُللت بواسطة المطحنة اليدوية للأنسجة وبين Bead Ruptor والتي عُزلت باستخدام طريقة Hot Phenol. (I) قيم Ct من qRT-PCR التي تستهدف جينًا تدبيريًا (مثل mysA) وعوامل نسخ (sigE و sigH). تمثل أشرطة الخطأ الخطأ المعياري من ثلاث مكررات بيولوجية (n = 3). تم حساب قيمة P باستخدام Student’s t-test. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
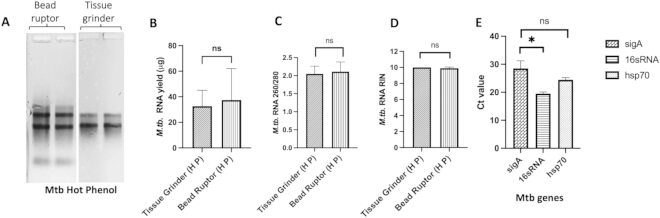
الشكل 3: عزل الـ RNA من Mtb باستخدام طريقة الفينول الساخن. (A) الترحيل الكهربائي لهلام الأغاروز يوضح إجمالي الـ RNA المستخلص باستخدام جهاز تمزيق الخرز (bead ruptor) ومطحنة الأنسجة اليدوية مع طريقة الفينول الساخن المحسنة من سلالة Mtb H37Rv. (B–D) مقارنة الـ RNA المعزول من حيث المردود، ونسبة 260/280، وتقدير سلامة الـ RNA (RIN). (E) قيم Ct من تفاعل qRT-PCR الذي يستهدف جينات sigA و16s rRNA وhsp70. تمثل أشرطة الخطأ الخطأ المعياري من ثلاث مكررات بيولوجية (n = 3). تم حساب قيمة P باستخدام اختبار t-test لطالب. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| الفينول الساخن | Trizol | طقم RNeasy | |
| الحصيلة | 60 -70 μg | 35 -50 μg | 30 - 45 μg |
| الوقت | ٢.٥-٣ ساعات | ٢-٢.٥ ساعة | 30-45 دقيقة |
| التكلفة/التفاعل | $0.10 – $0.20 | $1.500 – $2.00 | $7.00 – $10.00 |
| المحددات | مواد مسخ قوية تستهلك وقتاً طويلاً (الفينول/SDS) | تستغرق وقتاً طويلاً، وتتطلب كواشف عالية السمية مثل Trizol، وجهاز طرد مركزي مبرد، كما أنها أغلى بـ 15 مرة من طريقة الفينول الساخن. | مكلفة (أغلى بـ 72 مرة من الفينول الساخن)، وإنتاجية أقل، وانسداد العمود |
| المزايا | إنتاجية أعلى من حجم أقل، وتكلفة منخفضة، وعدم الحاجة إلى جهاز تكسير الخلايا (beat beater) لتحلل الخلايا، وعدم اشتراط الطرد المركزي المبرد. | إنتاجية متوسطة وتكلفة متوسطة، مع اشتراط الطرد المركزي المبرد | إنتاجية متوسطة، وتكلفة باهظة جداً |
| المحرك الرئيسي للتكلفة | كواشف مختبرية شائعة (مكونات منظم TES، الفينول الحمضي، الكلوروفورم، الإيزوبروبانول، الإيثانول) | كاشف TRI Reagent® التجاري، أو الكلوروفورم، أو الكلوروفورم: كحول الإيزوأميل، أو الإيزوبروبانول، أو الإيثانول | أعمدة الطرد المركزي والمحاليل المنظمة الخاصة بشركة Qiagen |
| رقم سلامة الحمض النووي الريبوزي (RIN) | 8-10 RIN | 7.5-10 RIN | 9-10 RIN |
الجدول 1: مقارنة التكلفة والوقت والقيود عبر 3 إجراءات مختلفة لاستخلاص الـ RNA (طرق الفينول الساخن، وTRIzol، وRNeasy).
الشكل التكميلي 1: تحسين عملية استخلاص الـ RNA. (أ) استخلاص الـ RNA باستخدام الفينول الساخن والتحلل باستخدام مطحنة أنسجة يدوية. (ب) استخلاص الـ RNA باستخدام TRIzol. (ج) استخلاص الـ RNA باستخدام طريقة RNeasy. (د) تحليل القياس الكثافي لصور الجيل الخاصة باستخلاص الـ RNA من Msmeg باستخدام طرق مختلفة. تمثل أشرطة الخطأ الخطأ المعياري المحسوب باستخدام GraphPad Prism (n = 8). (هـ) استخلاص الـ RNA باستخدام الفينول الساخن من سلالة Mtb. جميع صور الجيل هي مكررات بيولوجية مستقلة. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 2: (اللوحة العلوية) تحليل منحنى الانصهار لـ mysA, sigE, و sigH من M. smeg، العدد n = 3؛ (اللوحة السفلية) تحليل سلامة الـ RNA. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
بهدف تطوير طريقة بسيطة وقوية لاستخلاص الـ RNA من بكتيريا Mycobacterium، تم تحسين طريقة الفينول الساخن (Hot Phenol). لاحقاً، تمت مقارنة الـ RNA المستخلص باستخدام هذه الطريقة مع نهجين شائعين الاستخدام: TRIzol وطريقة مجموعة الاستخلاص القائمة على الأعمدة12,13. وقد تمت مقارنة هذه التقنيات بناءً على إنتاجية الـ RNA ونقاوته وسلامته والتكلفة ووقت المعالجة لتقييم مدى ملاءمتها للتطبيقات الجزيئية اللاحقة. أنتجت كل من طريقتا الفينول الساخن وTRIzol RNA سليماً وعالي الجودة، رغم أنها تستغرق وقتاً أطول نسبياً مقارنة بالطريقة القائمة على المجموعة. وقد أعطت الطرق الثلاث RNA متقارباً من حيث النقاوة والسلامة؛ ومع ذلك، وفرت طريقة الفينول الساخن باستمرار إنتاجية أعلى من الـ RNA. بالإضافة إلى ذلك، أعطى الـ RNA المستخلص باستخدام الفينول الساخن وTRIzol قيم Ct مماثلة. ومع ذلك، لوحظ وجود فرق دال إحصائياً في قيم Ct بين طريقتي الفينول الساخن وRNeasy. وبما أنه تم استخدام كميات متساوية من الـ RNA في التجربة، فقد كان من المتوقع الحصول على قيم Ct مماثلة عبر جميع الطرق. ويمكن إرجاع الاختلافات الملحوظة في حالة طريقة RNeasy إلى التباينات في كيمياء استخلاص الـ RNA؛ حيث أن الفينول الساخن وTRIzol طرق تعتمد على المذيبات العضوية وغالباً ما تكون أكثر فعالية في إذابة النسخ الصعبة، مثل تلك التي تشفر البروتينات الغشائية الجوهرية أو النسخ ذات المحتوى العالي من GC. في المقابل، تعتمد RNeasy على أعمدة السيليكا، وقد تؤدي إلى استعادة أقل لبعض النسخ التي لا ترتبط بكفاءة بالغشاء أو التي تُفقد أثناء خطوات الغسيل، مقارنة بالطرق القائمة على الفينول (Figure 2). ومن المهم الإشارة إلى أنه تم تحقيق إنتاجية متقاربة من الـ RNA باستخدام إما مطحنة أنسجة يدوية أو جهاز تكسير بالخرز (bead ruptor) لتحلل الخلايا، مما يتيح مرونة تشغيلية في تنفيذ عملية تحلل الخلايا. بالإضافة إلى ذلك، تم تحسين طريقة الاستخلاص لتعمل مع أحجام زراعة منخفضة ودون الحاجة إلى الطرد المركزي المبرد، وهذا التبسيط يعزز السهولة والكفاءة العامة لمعالجة العينات.
يُعد الموازنة بين التكلفة والوقت وجودة المخرجات عاملاً هاماً في اختيار طريقة استخلاص الـ RNA (الجدول 1). وبالرغم من أن طريقة الفينول الساخن تستغرق وقتاً أطول قليلاً، إلا أنها تظل فعالة للغاية من حيث التكلفة نظراً لاستخدام مواد كيميائية مخبرية شائعة وقدرتها على إنتاج عوائد عالية من الـ RNA (60–70 µg من RNA لـ Msmeg و 35–45 µg من RNA لـ Mtb لكل 3 mL من حجم المزرعة في طور النمو اللوغاريتمي المتوسط) حتى من حجم مزرعة منخفض يبلغ 3 mL، ودون الحاجة إلى استخدام أجهزة تكسير الخرز عالية الكفاءة كما هو متبع في معظم الطرق المنشورة حتى الآن. وهذا يجعلها مفيدة بشكل خاص للمختبرات التي تعمل في بيئات ذات موارد محدودة. وتختلف طرق استخلاص الـ RNA المعتمدة على الفينول الساخن المنشورة سابقاً في عدة جوانب رئيسية؛ فعلى سبيل المثال، استخدم Mangan وزملاؤه M. bovis لاستخلاص الـ RNA باستخدام طريقة الفينول الساخن، وأبلغوا عن عائد يقارب 20 µg من الـ RNA لكل 109 خلية، ومع ذلك، لم يتم تحديد المعايير الحرجة مثل حجم المزرعة ودرجة حرارة الاستخلاص بوضوح. بالإضافة إلى ذلك، تتضمن طريقتهم غسلاً بالمنظفات باستخدام Divolab-1 قبل التكسير الميكانيكي للخلايا، وهو كاشف غير متوفر بسهولة، يليه الاستخلاص باستخدام الكلوروفورم وكحول الإيزواميل11. وفي طريقة أخرى للفينول الساخن، تم استخلاص الـ RNA من خلايا Mtb، مما أعطى عائداً يقارب 39 µg من الـ RNA الكلي، وهو ما يماثل الطريقة المُحسّنة الموصوفة هنا، ولكن هذه الطريقة تطلبت حجماً مرتفعاً نسبياً للمزرعة (25 mL)، مما زاد من وقت المعالجة واستلزم استخدام أجهزة طرد مركزي أكبر، علاوة على ذلك، يتضمن الاستخلاص خليطاً من الكلوروفورم وكحول الإيزواميل، ولم يتم ذكر درجة حرارة الاستخلاص12,14. كما يُستخدم TRIzol على نطاق واسع للحصول على عائد وجودة جيدة من الـ RNA بتكلفة متوسطة15؛ ومع ذلك، كان العائد منخفضاً نسبياً. وتوفر مجموعة RNeasy راحة وسرعة فائقتين، مما يجعلها مناسبة لسير العمل الحساس للوقت أو المستخدمين الأقل خبرة، ولكن بتكلفة أعلى بكثير من الطريقتين الأخريين، وكان العائد منخفضاً بشكل ملحوظ. وباختصار، توفر الطريقة الموصوفة هنا مرونة تشغيلية في تحلل خلايا المتفطرات واستخلاص الـ RNA اللاحق، حيث تتيح للمستخدمين اختيار الطريقة الأنسب بناءً على أولوياتهم، سواء كانت التكلفة والعائد أو وقت المعالجة، مع الحفاظ على جودة وسلامة الـ RNA بشكل مماثل عبر الطرق الثلاث.
الإفصاحات
لم يكن هناك أي تضارب في المصالح بين المؤلفين. وقد وافق جميع المؤلفين على تقديم البحث.
شكر وتقدير
أود أن أعرب عن تقديري للدعم المقدم من وزارة التكنولوجيا الحيوية (DBT)، والمجلس الهندي للأبحاث الطبية (ICMR)، ومجلس أبحاث العلوم والهندسة (SERB).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| حبيبات سيليكا بحجم 0.1 ملم | MP Biomedicals | MP116911050 | |
| 2-بروبانول | سيجما (Sigma) | 278475 | |
| Bead Ruptor 4 | revvity | ||
| كلوروفورم | سيجما | 288306 | |
| جهاز طرد مركزي مبرد | ThermoScientific | 42541217 | |
| دي إن إيز 1 (DNase I) | qiagen | 79254 | |
| إيديتات (EDTA) | سيجما | E02SS | |
| HCl | مختبر الأبحاث والخدمات (SRL) | 62889 | |
| كتلة تسخين | MIULAB | MU-E02-1049 | |
| طقم النسخ العكسي للحمض النووي الريبوزي المتمم (cDNA) عالي السعة | Thermo Fischer Scientific | 4368814 | |
| مطحنة أنسجة تعمل بمحرك G10 | إكليل | G22616008 | |
| NaCl | سيجما | S5886 | |
| جهاز قياس الطيف الضوئي النانوي (Nanophotometer N50) | تنفيذ | T51601 | |
| فينول متوازن مع محلول سترات منظم بتركيز 0.1 مولار، وبأس هيدروجيني (pH) 4.5 | سيجما | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| مقياس الفلورية Qubit 4 | Invitrogen | 2.32262E+12 | |
| جهاز الدورات الحرارية لتفاعل البوليميراز المتسلسل في الوقت الحقيقي (Real-Time PCR) | Analytik Jena AG | 844-00503-2 | |
| طقم استخلاص الحمض النووي الريبوزي السهل RNA easy Kit | Qiagen | 74104 | |
| سلفات دوديسيل الصوديوم (SDS) | سيجما | S9888 | |
| خلات الصوديوم | سيجما | S2889 | |
| جهاز الدورات الحرارية | Biorad | 621BR29739 | |
| كاشف TRI | سيجما | T9424 | |
| قاعدة تريس (Tris base) | Himedia | MB029 | |
| β-ميركابتويثانول | سيجما | 516732 |
المراجع
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
إعادة الطباعة والأذونات
الوسوم
