هنا، نصف بروتوكولا في المختبر لنمذجة نقص الأكسجين/تلف إعادة الأكسجين في الخلايا الظهارية الأنبوبية القريبة ذات الأيض العالي. تم تصميم هذا النموذج لتحفيز الضرر الناتج عن الإجهاد الأيضي، والذي يمكن قياسه من خلال التعبير عن علامات تلف الأنابيب القريبة وتقييم وظيفة الجهاز التنفسي الميتوكوندري.
مقالة منهجية
نمذجة إصابة نقص الأكسجين/إعادة الأكسجين في الخلايا الظهارية الأنبوبية القريبة
في هذه المقالة
ملخص
الملخص
زراعة الكلى تشكل حوالي 60٪-65٪ من جميع الأعضاء الصلبة المزروعة. معظم الكلى المتبرعة تحصل على من أشخاص متوفين، مما يتطلب حفظا باردا لفترة طويلة، وهو سبب معروف في نتائج الزرع السيئة. على الرغم من استراتيجيات الحفظ الحالية، تظل إصابة نقص التروية وإعادة التروية (IRI) نتيجة لا مفر منها لانقطاع تدفق الدم المؤقت، مما يؤدي إلى نقص الأكسجين والمغذيات. داخل النيفرون، تكون خلايا الظهارة الأنبوبية القريبة (PTECs) من الجزء الثالث عرضة بشكل خاص لالتهاب الرجلين بسبب طلبها الأيضي العالي واعتمادها على الفسفرة التأكسدية للميتوكوندريا. على المستوى الجزيئي، يعطل الالتهاب الأقلي الداخلي الأيض للميتوكوندريا ويقلل من إنتاج ATP، مما يقلل من متطلبات الطاقة لخلايا الظهارة الأنبوبية القريبة (PTECs) ويعزز الاستماتة والنخر. لدراسة هذه الآليات وتقييم الاستراتيجيات العلاجية المحتملة، من الضروري وجود نماذج مدارية قوية وقابلة للتكرار لالتهاب الرجلان الصناعي الكلوي التي تعيد بدقة التعرض الأيضي لمضادات PTEC. هنا، نصف بروتوكولا لتحفيز وتقييم إصابة نقص الأكسجة/إعادة الأكسجة (H/R) في مكونات PTEC الخالدة في الفأر (IM-PTECs). يتضمن البروتوكول معلومات مفصلة عن تركيب الوسط وظروف الزراعة اللازمة للحفاظ على هذه الخلايا، تليها تحفيز إصابة H/R من خلال مراحل تأكسج محكومة وإعادة الأكسجة التي تحاكي بشكل وثيق أحداث نقص التروية وإعادة التروية في الكلى المزروعة. يوفر هذا النموذج منصة قيمة لتقييم تأثيرات التدخلات المختلفة على خلايا الظهارة الكلوية المعرضة لإصابة H/R. يمكن تقييم تأثير هذه العلاجات من خلال تحليل تعبير العلامات المرتبطة بتلف العلاج الطبيعي، وكذلك من خلال تقييم وظيفة الجهاز التنفسي الميتوكوندري. معا، تقدم هذه القراءات رؤى ميكانيكية حول فعالية المركبات وعمليات التعافي الخلوي، مما يدعم تطوير علاجات مستهدفة لالتهاب الأشعة الكلوية.
المقدمة
وفقا للمرصد العالمي للتبرع والزراعة، تمثل زراعة الكلى حوالي 60٪-65٪ من جميع عمليات زراعة الأعضاء الصلبة حول العالم، حيث كان عدد العمليات التي أجريت في عام 2023 أعلى بنحو ثلاثة أضعاف من عمليات زراعة الكبد، حيث يعد الأخير ثاني أكثر أنواع زراعة الكبد. في 61٪ من عمليات زراعة الكلى التي أجريت في ذلك العام، نشأ العضو من متبرعين متوفين1، وهو ما يتطلب فترة حفظ أطول مقارنة بالزراعة من متبرعين أحياء، حيث يكون وقت الانتظار أقصر بكثير2. خلال فترة الحفظ هذه، عادة ما تحفظ الكلى باستخدام التخزين البارد الساكن لإبطاء عملية الأيض الخلوي، مما يقلل من الأكسجين والطاقة وبالتالي يحد من الإصابة الإقفاري3. ومع ذلك، يوفر التخزين البارد الثابت حماية جزئية فقط، لأنه لا يستطيع الحفاظ بالكامل على الأيض الخلوي أو توصيل الأكسجين، مما يؤدي إلى خلل أيضي تدريجي أثناء الحفظ 4,5. بدلا من ذلك، ظهر الحفاظ الطبيعي-الحراري خارج الجسم كاستراتيجية فعالة للحفاظ على العضو عند درجة حرارة قريبة من الفسيولوجيا، مما يدعم الأيض الخلوي والأكسجة، وبالتالي يقلل من إصابة نقص التروية-إعادة تروية (IRI)6.
ومع ذلك، أثناء زراعة الكلى، فإن إصابة الكلى الحادة (AKI) الناتجة عن التهاب الداخل الداخلي هي نتيجة لا مفر منها. يحدث التهاب الالتهابات الالتهابية عن انقطاع تدفق الدم عبر العضو، مما يؤدي إلى اختلال في التوازن بين عرض وطلب الأكسجين والمغذيات7. تؤثر هذه العملية بشكل مباشر على وظيفة الكلية المزروعة، وتزيد من خطر الرفض الحاد وتقليل وظيفة الطعم طويلة الأمد 8,9.
PTECs - التي تكثر بشكل خاص في قشرة الكلى - معرضة بشكل خاص لالتهاب الأشعة الشعاعية الشعاعية. تشكل هذه الخلايا حوالي 60٪-70٪ من الظهارة الأنبوبية وهي مسؤولة عن إعادة امتصاص معظم المرشح الكبيبي، بما في ذلك الماء والأيونات والجلوكوز والأحماض الأمينية10. نشاطها الأيضي العالي مدعوم بشبكة ميتوكوندرية واسعة لتلبية متطلبات النقل المعتمدة على ATP11. وبالتالي، فهي شديدة الحساسية للاضطرابات الأيضية، مثل نقص الأكسجين وخلل الميتوكوندريا، وكلاهما من السمات المركزية في IRI12.
خلال الفتحة الشعاعية الداخلية، يؤدي حرمان الأكسجين إلى تعطيل الفسفرة التأكسدية للميتوكوندريا، مما يؤدي إلى استنزاف ATP وضعف وظيفة إعادة الامتصاص13,14. هذا يبدأ التحول الأيضي من أكسدة الأحماض الدهنية (FAO) إلى التحلل اللاهوائي وتنشيط مسار فوسفات البنتوز، الذي، رغم أنه وقائي مؤقت، إلا أنه غير كاف لتلبية متطلبات الطاقة والأكسدة الاختزالية لهذه الخلايابشكل كامل. إذا استمر كبت FAO خلال مرحلة الإصلاح، فإن تراكم الدهون16 وسم الدهون17، مما يزيد من تلف الخلايا ويضعف قدرتها التجددية18. يمكن أن تؤدي هذه الحالة الأيضية غير التكيفية في النهاية إلى ضمور الأنبوب، والتليف الخلالي، وتطور المرض الكلوي المزمن19.
هذا الضعف الأيضي، الناتج عن نقص في FAO، يعيق القدرة على تلبية الاحتياجات العالية للطاقة في أنبوب الكلى17,19. يؤدي استنزاف ATP وتراكم الدهون الناتج إلى خلل في وظيفة الميتوكوندريا وتوليد أنواع الأكسجين التفاعلية، التي تنشط الإشارات المضادة للالتهابات وتسرب الكريات البيضاء 20,21,22. الالتهاب المستمر والإصابة التأكسدية تزعزعان سلامة الميتوكوندريا، مما يضخم فشل الطاقة وفي النهاية يؤدي إلى موت الخلايا المبوتجة والنخرية23,24. خلال هذه المرحلة من الإصابة الحادة، يتم رفع المؤشرات الحيوية المحددة مثل جزيء إصابة الكلى 1 (KIM-1) والدهون المرتبطة بالنيوتروفيل جيلاتيناز (NGAL)، مما يشكل مؤشرات حساسة لتلف الأنابيب القريبة وAKI25 المبكر.
بعد الإصابة الحادة، تعزز آليات الإصلاح غير التكيفية ترسيبا مفرطا في المصفوفة خارج الخلية، وهو علامة مميزة للتليف الكلوي26. من بين مكونات المصفوفة خارج الخلية، يتجمع الكولاجين، وخاصة الكولاجين من النوع الأول (المشفر بواسطة جين Col1a1)، في الفضاء البيني، مما يساهم في ضمور الأنبوبات وفقدان النسيج الوظيفي27. يرجع هذا التشكيل الليفي إلى حد كبير إلى شيخوخة الأنابيب والانتقال الجزئي من الظهارة إلى الميزنكيمية (pEMT) في الخلايا الظهارية الأنبوبية، مما يؤدي في النهاية إلى تدهور وظائف الكلى 28,29,30. يساعد ظهور اضطراب الكلى العضلي الكلوي والتليف في التقدم من التهاب الكلى المزمن، مما يؤدي إلى فقدان لا رجعة فيه لوظيفة الكلى وتراجع في بقاء الطعم31,32.
في هذا البروتوكول، نصف نموذجا في المختبر لإصابة H/R باستخدام خلايا ظهارية أنبوبية قريبة خالدة من نوع SV40 من الفأر (IM-PTECs)، وخضعت لحالات H/R مضبوطة. اعتمدت معظم الدراسات ما قبل السريرية حول التهاب الرجلين الشعاعي الكلوي تقليديا على نماذج حيوانية، التي تعيد إنتاج الاستجابات المعقدة للأوعية الدموية والمناعة في الكلى لكنها تنطوي على تكاليف أعلى، ومخاوف أخلاقية، وتباين بيولوجي أعلى بكثير33,34. وقد أبطأت هذه القيود تطوير أنظمة الخلايا التكميلية الصحيحة للدراسات الميكانيكية التفصيلية وعالية الإنتاجية. يتيح هذا الإعداد التجريبي محاكاة قابلة للتكرار لحرمان الأكسجين واستعادته، مما يحاكي الميزات الرئيسية لمؤشر الأشعة الشعاعية التي لوحظت في الكلى المزروعة. يعمل النموذج كأداة قيمة لدراسة الآليات الخلوية والجزيئية الكامنة وراء الإصابة الأنبوبية، وتعبير المؤشرات الحيوية، والاستجابات الليفية في بيئة مضبوطة. علاوة على ذلك، يوفر منصة ملائمة لفحص وتقييم الاستراتيجيات العلاجية المحتملة التي تهدف إلى منع أو التخفيف من أضرار الإقفاري وتحسين نتائج ما بعد الزرع.
البروتوكول
الخلايا المستخدمة في هذا البروتوكول لم تعزل ضمن سياق هذه الدراسة. كانت معزولة سابقا وأصبحت متاحة من قبل باحثين آخرين35. لذلك، لم تجر تجارب جديدة على، ولم تكن هناك حاجة للموافقة الأخلاقية للعمل الحالي.
1. ثقافة IM-PTEC
- جهز المتوسط L3 كما هو موضح في الجدول 1.
- قم بإذابة قارورة من IM-PTECs. زراعة حوالي 1 ×10 6 خلايا عند 33 درجة مئوية في حاضنة رطبة تحت ظروف قياسية (5٪ ثاني أكسيد الكربون2، الأكسجينالجوي 2) حتى التقاء 80٪ (عادة بعد 3 أيام).
ملاحظة: يتم عزل IM-PTECs من فئران Immorto. للحصول على بروتوكول مفصل حول عزل IM-PTEC، يرجى الرجوع إلى35. - زراعة الخلايا الفرعية مرتين في الأسبوع بنسبة تقسيم تقريبية 1:10. للمرور، قم بفصل الطبقة الأحادية الملتصقة باستخدام 0.05٪ تريبسين-إيدتا لمدة 2-3 دقائق عند درجة حرارة 33 درجة مئوية، ثم تعادلها بوسط نمو كامل، وأعد البذور في قوارير زراعة جديدة.
| مكون | الكمية/التركيز النهائي على الوسائط |
| DMEM/F12 | 500 مل |
| مصل العجل الجنيني (FCS) | 10% |
| بنسلين | 10,000 وحدة وحدة سحرية/مل |
| الستربتوميسين | 10,000 ميكروغرام/مل |
| إل-جلوتامين | 0.02 ميكرومولار |
| إنسولين | 5 ميكروغرام/مل |
| ترانسفيرين | 5 ميكروغرام/مل |
| صوديوم سيلينيت | 5 ميكروغرام/مل |
| تراييودوثيرونين | 40 بيغا/مل |
| الهيدروكورتيزون | 36 نانوغرام/مل |
| عامل نمو البشرة | 20 نانوغرام/مل |
| γ الإنترفيرون (IFN-γ) | 10 نانوغرام/مل |
الجدول 1: تركيب الوسط باللغة الثالثة.
2. الثقافة التقييدية للمتداخلين الصناعيين المستقلين (IM-PTECs)
- الزراعة الفرعية كما هو موضح في الخطوة 1.3 ونقل كامل تعليق الخلية من قارورة T-25 واحدة من IM-PTECs إلى قارورة T-75 تحتوي على حوالي 10 مل من وسط L3 بدون إنترفيرون-γ (IFN-γ). الزراعة عند 37 درجة مئوية تحت الظروف القياسية حتى نقطة التقاء 80٪ (عادة بعد 3 أيام).
- الزراعة الفرعية كما هو موضح في الخطوة 1.3 ونقل كامل التعليق الخلوي من قارورة T-75 واحدة إلى قارورتين T-175 تحتويان على حوالي 20 مل من وسط L3 بدون IFN-γ. الزراعة عند 37 درجة مئوية تحت الظروف القياسية حتى نقطة التقاء 80٪ (عادة بعد 3 أيام).
- ألواح IM-PTECs للتجارب عن طريق فصل الخلايا من المزارع المتداخلة باستخدام 0.05٪ تريبسين-EDTA، وإعادة تعليقها في وسط كامل، وزرع البذور بالكثافة المطلوبة (تقريبا 1 × 10⁵). استخدم ألواح ذات 6 آبار لتحليل التعبير الجزيئي للعلامات، أو الصفائح الصغيرة لزراعة الخلايا ذات 96 بئر مناسبة لدراسات التنفس الميتوكوندري.
ملاحظة: في تجارب أخرى، استخدم تنسيق الزراعة المناسب.- عند طلاء الخلايا في لوحة صغيرة بمزرعة خلايا بسعة 96 بئر لدراسات التنفس الميتوكوندري، اترك الأربعة آبار في الزوايا فارغة لاستخدامها كتصحيح خلفي. اترك اللوحة الدقيقة لمدة ساعة واحدة في درجة حرارة الغرفة قبل وضعها في الحاضنة للسماح للخلايا بالاستقرار.
3. إجراء نقص الأكسجين/إعادة الأكسجة (الشكل 1)
- قم بتحديث IM-PTECs بإزالة وسائط الزراعة وإضافة وسط L3 طازج بدون IFN-γ (0.1 مل/بئر لألواح 96 بئر أو 2 مل/بئر لصفائح ذات 6 آبار). ضع الخلايا في حاضنة نقص الأكسجين عند 1٪ درجة حرارةو2 درجة مئوية 5٪ وثاني أكسيد الكربون2، وعند 37 درجة مئوية لمدة 48 ساعة.
- قم بإزالة الخلايا من حاضنة نقص الأكسجين وتجديدها بوسط L3 بدون γ IFN. ضع الخلايا في حاضنة زراعة الخلايا بظروف O2 القياسية و5٪ ثاني أكسيد الكربون2 عند 37 درجة مئوية لمدة 24 ساعة.
ملاحظة: يمكن تحقيق حالات نقص الأكسجين باستخدام حاضنة نقص الأكسجين أو غرفة نقص الأكسجين المعيارية متصلة بمصدر غاز محكم.
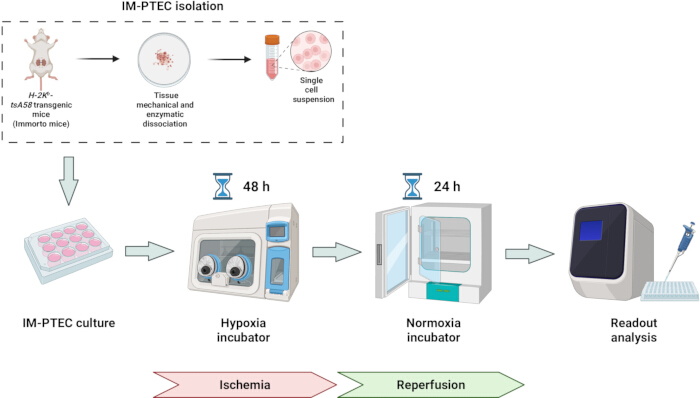
الشكل 1: تمثيل تخطيطي لنموذج H/R في الخلايا الظهارية الأنبوبية القريبة الخالدة (IM-PTECs). تم زراعة IM-PTECs المشتقة من فئران H-2Kb-tsA58 المعدلة وراثيا (Immorto) تحت ظروف طبيعية، وتعرضت لنقص الأكسجين (1٪O 2، 48 ساعة)، ثم أعيد تزويدها بالأكسجين (ظروف O2 القياسية، 24 ساعة)، لتحليل القراءة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
4. تحليل تعبير العلامات الجزيئية
- عزل الحمض النووي الريبي
- أضف 800 ميكرولتر من مادة عزل RNA إلى كل بئر من صفيحة ذات 6 آبار. حضن لمدة 5 دقائق في درجة حرارة الغرفة. انقل العينات إلى أنابيب طرد مركزي دقيقة خالية من RNAse بسعة 1.5 مل.
- أضف 200 ميكرولتر من الكلوروفورم وامزج جيدا لمدة 15 ثانية عن طريق التوصيل بالماصات. حضن في درجة حرارة الغرفة لمدة 2-3 دقائق.
- الطرد المركزي عند 12,000 × g عند 4 درجات مئوية لمدة 12 دقيقة. نقل الطور العلوي المائي إلى أنبوب طرد مركزي دقيق خال من RNAes بسعة 1.5 مل.
- أضف 500 ميكرولتر من الأيزوبروبانول. حضن في درجة حرارة الغرفة لمدة 10 دقائق. الطرد المركزي عند 12,000 × g عند 4 درجات مئوية لمدة 10 دقائق.
- تخلص من المادة الفائقة واغسل الحبيبات ب 1 مل من الإيثانول بنسبة 70٪. الطرد المركزي عند 5,000 × g عند 4 درجات مئوية لمدة 5 دقائق. تخلص من السوبرناتانت.
- جفف الحبيبات بالهواء. قم بإذابة الحبيبات في 12 ميكرولتر من الماء الخالي من الحمض النووي الريني.
- سخن العينة على درجة حرارة 56 درجة مئوية لمدة 15 دقيقة. قس تركيز الحمض النووي الريبي في مطياف UV-Vis ميكروحجم.
ملاحظة: دائما احتفظ بالعينات على الثلج بين خطوات الحضانة لتجنب تحلل الحمض النووي الريبي.
- النسخ العكسي
- على الثلج، أضف مكونات التفاعل التالية إلى أنبوب طرد مركزي دقيق خالي من الحمض النووي الريبي بسعة 0.2 مل: 10 ميكرولتر من خليط رئيسي (2x)، 2 ميكرولتر من خليط الإنزيم، 1-5 ميكروغرام RNA، وحتى 20 ميكرولتر منH2O. خالي من النوكليز.
- اخلط بلطف وحضن عند 25 درجة مئوية لمدة 10 دقائق، ثم الحضانة عند 50-55 درجة مئوية لمدة 10 دقائق.
- قم بتعطيل التفاعل عن طريق التسخين عند 85 درجة مئوية لمدة 5 دقائق ثم تبريده على الثلج. قم بتخفيف cDNA بنسبة 1:5 أو 1:10.
- PCR الكمي في الوقت الحقيقي (RT-qPCR)
- جهز مجموعات البرايمر بخلطها بتركيز نهائي 10 ميكرومولار (الجدول 2).
- لكل جين للقياس، حضر خليط qPCR في الوقت الحقيقي (RT) يحتوي على الكواشف التالية لكل بئر: 5 ميكرولتر من خليط RT-qPCR الرئيسي؛ 0.4 ميكرولتر من 10 ميكرومولار أمامي، 0.4 ميكرولتر من 10 ميكرومولار برايمر عكسي، و2.2 ميكرولتر من الخامس الخالي من النوكليازH2O.
- أضف 8 ميكرولتر من خليط RT-qPCR إلى كل بئر من لوحة PCR بسعة 384 بئر. أضف 2 ميكرولتر من عينة cDNA إلى كل بئر، مع ترك قطرة على حافة البئر.
- بعد إضافة جميع العينات، اضغط على الطبق بلطف حتى تسقط جميع القطرات في الآبار. أغلق اللوح بإحكام بالغشاء. قم بتدوير لوحة PCR ذات 384 بئر.
- قم بالقياس في نظام QPCR RT مع البرنامج التالي: 98 °م لمدة 30 ثانية، 40 دورة من 98 °م لمدة 10 ثوان تليها 60 °م لمدة 30 ثانية، ومنحنى انصهار عند 95 °م.
| الجين | تسلسلات البادئية |
| كيم-1 | F: 5' - TGGTTGCCTTCCGTGTCTCTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| نغال | F: 5' - ATGTCACCTCATCCTGGTCAG |
| R: 5' - GCCACTTGCACATTGTGTGTGTG | |
| Acta2 | مهاجم: 5' - GCCATTTTTCATTTGGGATGGGA |
| R: 5' - CCCCTGACAGGACGTGTTA | |
| Col1a1 | F: 5' - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGACCTTTTGCCAGG |
الجدول 2: تسلسلات البادئات المستخدمة في RT-qPCR.
5. تقييم وظائف الجهاز التنفسي الميتوكوندريا
- اليوم الذي سبق الفحص
- شغل محلل معدل استهلاك الأكسجين (OCR)/معدل التحمض خارج الخلية (ECAR) ودعه يسخن قبل التجربة على الأقل 5 ساعات.
- ترطيب خرطوشة مستشعر عند 37 درجة مئوية في حاضنة غيرCO2 خلال الليل.
- يوم الفحص
- تحضير وسط اختبار للوحة ميكرو لزراعة خلية بسعة 96 بئرا تحتوي: 33.4 مل من وسط DMEM pH 7.4؛ 0.875 مل من الجلوكوز 1 م (التركيز النهائي 25 ملم)؛ 0.35 مل من البيروفات 100 ملليمول (التركيز النهائي 1 ملليمولار); و0.35 مل من الجلوتامين 200 ملليمول (التركيز النهائي 2 ملليمو).
- حضر محاليل مثبطات كما هو موضح في الجدول 3.
- قم بإزالة خرطوشة المستشعر المجمعة من الحاضنة. تحميل 25 ميكرولتر من كل مثبط في المنفذ المقابل باستخدام ماصة متعددة القنوات ودليل تحميل.
- إزالة وسط نمو زراعة الخلايا من صفيحة الزراعة الصغيرة. أضف 175 ميكرولتر من وسط الفحص المسخن مسبقا (37 درجة مئوية) إلى كل بئر باستخدام ماصة متعددة القنوات.
- ضع لوحة زراعة الخلايا في حاضنة غير ثاني أكسيد الكربون بدرجة حرارة 37 درجة مئوية لمدة 45-60 دقيقة قبل الاختبار.
- ضع لوحة المعايرة مع خرطوشة المستشعر المحملة في محلل OCR/ECAR للمعايرة.
- ضع لوحة زراعة الخلايا الصغيرة في الجهاز للقياس.
- بعد التشغيل، احتفظ بلوحة زراعة الخلايا لقياس البروتين الكلي لتطبيع البيانات.
| [خرطوشة] (ميكروم) | [وسيط الفحص] (ميكروم) | الميناء أ | الميناء B | الميناء ج | |
| أوليغوميسين | 12 | 1.5 | 8.4 ميكرولتر | ||
| FCCP | 9 | 1 | 6.3 ميكرولتر | ||
| أنتيميسين أ | 25 | 2.5 | 17.5 ميكرولتر | ||
| روتينوني | 12.5 | 1.25 | 8.75 ميكرولتر | ||
| وسيط الفحص | 3.5 مل | 3.5 مل |
الجدول 3: حلول المثبطات لتقييم التنفس الميتوكوندري.
النتائج
تم إجراء التحقق الزمني أولا لتحديد الظروف المثلى لنقص الأكسجين/إعادة الأكسجة (H/R) لإعادة إنتاج الإصابة الإقفارية في IM-PTECs. تم استخدام تنشيط كاسباز-3، وهو علامة مميزة لإصابة نقص التروية الكلوية في الجسم الحي والمختبري، كمؤشر على دقة النموذج36,37. وجدنا أن 48 ساعة من نقص الأكسجين تليها 24 ساعة من إعادة الأكسجين أنتجت أكبر زيادة في نشاط كاسباز-3. ظلت بقاء الخلايا، التي تم تقييمها بواسطة اختبار MTT، مماثلة لتلك الخاصة بالضوابطات الطبيعية تحت هذه الظروف، مما يشير إلى أنه بينما تم بدء إشارات الاستماتة، ظلت الخلايا صالحة للاختبارات الدوائية اللاحقة (الشكل التكميلي 1). ثم استخدم هذا البروتوكول المعتمد لتحفيز إصابة H/R من خلال نقص الأكسجين المسيطر عليه/إعادة الأكسجين لمركبات IM-PTECs.
بعد الإصابة الإقفاري، تم إجراء RT-qPCR لتحديد تعبير عدة علامات لتلف الكلى (الشكل 2). أظهر RT-qPCR أنه، في سياق الالتهاب الكئلي، زاد تعبير كيم-1 38,39 ونغال40,41، وهما علامات معروفة لإصابة الكلى الحادة، بشكل ملحوظ. علاوة على ذلك، تم زيادة تعبير علامات Acta242,43 و Col1a1 44,45,46، وهي مؤشرات pEMT/التليف الكلوية. بالإضافة إلى كونه علامة pEMT الكلى/التليف، يمكن ربط تعبير الكولون 1a1 بشدة مرض الكلىالمزمن 47. /p>
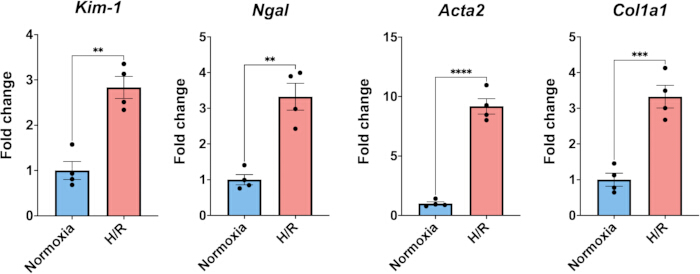
الشكل 2: التعبير الجزيئي لعلامات إصابة الكلى تحت النورموكسيا أو نقص الأكسجين/إعادة الأكسجين (H/R). بعد H/R، يزداد تعبير علامات إصابة الكلى الجزيئية كيم-1، نغال، أكتا2، وكول1a1 بشكل ملحوظ في IM-PTECs. تعرض البيانات كمتوسط ± خطأ معياري للمتوسط (SEM) من أربعة نسخ بيولوجية لكل حالة. تم تقييم الدلالة الإحصائية باستخدام اختبار t للطالب ذو الذيلين غير المقربين. تشير المستويات المعدلية إلى ما يلي: p < 0.05 (*)، p < 0.01 (**)، p < 0.001 (***)، وp < 0.0001 (****). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
كما أجريت دراسات على التنفس الميتوكوندري لتحديد القدرة التنفسية للميتوكوندريا بعد H/R (الشكل 3). من خلال قياس معدل استهلاك الأكسجين (OCR)، تبين أنه، بعد التحدي الإقفاري، تم تقليل جميع معايير التنفس الميتوكوندري (التنفس القاعدي، إنتاج ATP، تسرب البروتونات، أقصى تنفس ممكن، والسعة الفائضة)، مما يشير إلى تراجع الأيض الميتوكوندري.
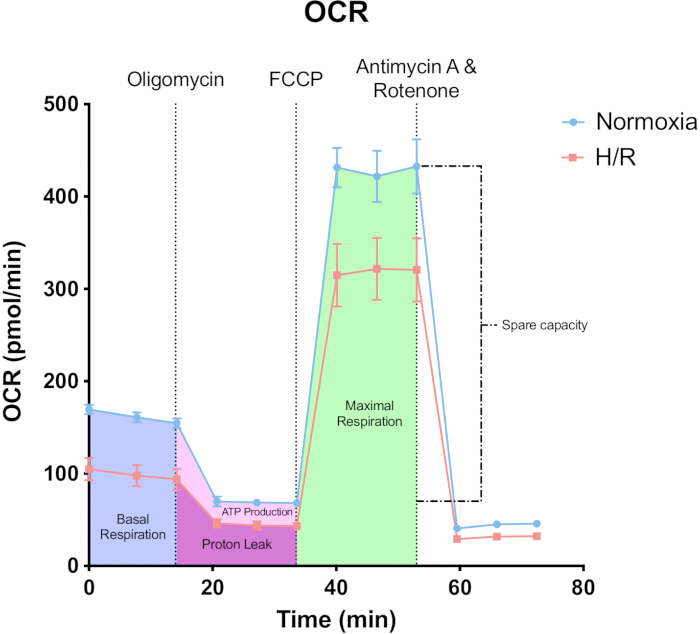
الشكل 3: معدل استهلاك الأكسجين (OCR) في IM-PTECs تحت ظروف نورماكتكس أو نقص الأكسجين. بعد نقص الأكسجين/إعادة الأكسجة (H/R)، تظهر IM-PTECs انخفاضا في وظيفة الجهاز التنفسي الميتوكوندري. تم تقييم التنفس الميتوكوندري بإضافة مثبطات سلسلة نقل الإلكترونات بشكل متتالي: أوليغوميسين، FCCP (كاربونيل سيانيد-ب-تري فلوروميثوكسفينيل هيدرازون)، أنتي ميسين A، وروتينون. تعرض البيانات كمتوسط ± خطأ معياري للمتوسط (SEM) من أربعة نسخ بيولوجية لكل حالة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
تؤكد هذه النتائج أن بروتوكول H/R يحفز بفعالية تغييرات جزيئية وأيضية تتوافق مع الإصابة الكلوية الإقفارية في IM-PTECs48,49. لذا يوفر هذا البروتوكول إطارا مفيدا لإعادة إنتاج حالات شبيهة بنقص التروية الكلوية في المختبر.
الشكل 1 الإضافي. قدرة الخلايا على البقاء ونشاط الكاسباز-3 في ظروف نورموكسيا ونقص الأكسجين/إعادة الأكسجين (H/R). (أ) صلاحية الخلايا. تم تقييم بقاء الخلايا بواسطة اختبار MTT بعد التعرض للنورموكسيا أو نقص الأكسجين/إعادة الأكسجين (H/R). تعبر النتائج عن الصلاحية النسبية (٪) التي تم تطبيعها إلى ضوابط نورمأكسيكية. (ب) كاسبات مشقوق-3. تم قياس نشاط الكاسباز-3 المقطوع (nmol/min/mg) في الخلايا التي تعرضت لفترات مختلفة من النورموكسيا (N)، نقص الأكسجين (H)، وإعادة التروية (R). تعرض البيانات كمتوسط ± SEM، وكل نقطة تمثل نسخة بيولوجية فردية. يرجى الضغط هنا لتحميل هذا الشكل.
المناقشة
يتم توليد معظم البيانات قبل السريرية حول AKI الناتج عن الالتهاب الكلوي من خلال النماذج الحية 50,51,52,53، بسبب نقص النماذج المعتمدة في المختبر. هذا، بالإضافة إلى محدودية توفر خطوط الخلايا الظهارية الأنبوبية القريبة المخلصة من الفأر الموصوفة جيدا، يقيد البحث الصناعي، مما يجعل تطوير هذا البروتوكول أصلا ذا قيمة. توفر هذه الطريقة منصة أكثر سهولة وتكرارا لدراسة آليات إصابات H/R الكلوية تحت ظروف مضبوطة، مع تقليل الحاجة إلى الاستخدام الحيواني.
علاوة على ذلك، يستخدم هذا البروتوكول بشكل أساسي معدات مختبرية قياسية، مما يسهل تنفيذه دون الحاجة إلى أجهزة متخصصة ومكلفة. الاستثناء الوحيد هو الحاجة إلى حاضنة نقص الأكسجين، والتي تتوفر عادة في مختبرات أبحاث السرطان لإعادة خلق بيئات أورام منخفضة الأكسجين 54,55,56. تدعم هذه الإمكانية تبني أوسع وتعزز قابلية التكرار عبر المختبرات المختلفة.
اعتبار حاسم في هذا البروتوكول هو الثقافة الصحيحة لأنظمة IM-PTECs. يجب زراعة الخلايا عند درجة حرارة 33 درجة مئوية وتزويدها ب IFN-γ لتجنب تقليل نشاط SV40. قبل الإجراءات التجريبية، يتم نقل IM-PTECs إلى ظروف تقييدية لمدة 7 أيام قبل بدء التجارب. يتم تحقيق الزراعة التقييدية عن طريق رفع درجة الحرارة إلى 37 درجة مئوية وإزالة الإنترفيرون-غاما (IFN-γ) من الوسط لمدة أسبوع واحد، مما يقلل من تعبير مستضد SV40 الكبير T - وهو بروتين فيروسي مشفر بواسطة فيروس 40، يستخدم لتخليد الخلايا المسببة لخلايا35,57 التي تفقد حالتها الخالدة ويعزز نمطا ظاهريا أكثر تمايزا وصلة فسيولوجية58. ومن الجدير بالذكر أن IM-PTECs يمكن أن تطور فقاعات سيتوبلازمية بارزة بعد عدة أيام من الزراعة؛ إذا حدث التهوية، يجب حذف الهيدروكسي كورتيزون من وسط الزراعة لمنع هذا التغير أو عكسه.
بينما يوفر استخدام PTECs الخالدة ميزة الاستقرار وسهولة الصيانة، قد يفكر الباحثون أيضا في استخدام الخلايا الطهارية الأنبوبية القريبة الأولية لزيادة الصلة الفسيولوجية. ومع ذلك، فإن PTECs الأولية للفئران تقدم تباينا أكبر بين المتبرعين59.60 ولديها قدرة تكاثر محدودة 61.62، مما يجعلها أقل ملاءمة للتجارب عالية الإنتاج أو طويلة الأمد. قد يكون استخدامها أكثر ملاءمة لدراسات التحقق أو عند دراسة الردود المستمدة من المرضى
يوفر هذا البروتوكول منصة قيمة للتحقيق في الآليات الجزيئية الكامنة وراء إصابة H/R، وتحديد وتقييم الأساليب العلاجية المحتملة، واستكشاف الاستجابات الخلوية مثل الالتهاب، والإجهاد التأكسدي، ومسارات موت الخلايا في بيئة محكمة63,64.
ومع ذلك، فإن القيود المهمة لهذا النموذج هي أنه لا يعيد إنتاج بعض خصائص نقص التروية التي لوحظت في زراعة الكلى، مثل انخفاض حرارة الجسم ونقص العناصر الغذائيةأثناء التخزين البارد. تؤثر هذه الحالات بشكل كبير على الأيض الخلوي وأنماط الإصابات، وقد يحد غيابها من ترجمة النتائج إلى البيئة السريرية 65,66.
في الختام، يوفر هذا النموذج المختبري H/R في IM-PTECs نهجا قابلا للتكرار، وسهل الوصول، ومواتيا أخلاقيا لدراسة إصابة نقص التروية الكلوية وإعادة التروية تحت ظروف مضبوطة. ورغم أنه لا يعكس تماما تعقيد نقص التروية في الجسم الحي ، إلا أنه يمثل أداة مكملة قيمة لتوضيح الآليات الخلوية، وفحص المرشحين العلاجيين، وتقليل الاعتماد على التجارب الحيوانية في أبحاث الكلى.
الإفصاحات
يعلن المؤلفون أنه لا يوجد لديهم تضارب مصالح مع هذا العمل للكشف عنه
شكر وتقدير
ينتمي ماريانو مارين-بلازكيز إلى "برنامج الدكتوراه في علوم الصحة" من الجامعة الكاثوليكية في مورسيا (UCAM). العمل في مجموعة روبن رابادان-روس وروبن زاباتا-بيريز مدعوم بمنحة من وزارة العلوم والتعليم وجامعات العلوم - مشروع التوليد في الكونوسيميينتو 2023 (PID2023-147560OA-I00). يحظى روبن رابادان-روس بدعم من منحة من مؤسسة العلوم - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024). تحظى AT بدعم مالي من منحة انضمام NWO-FAPESP حول الشيخوخة الصحية التي نفذتها Zonmw (رقم 457002002) ومنحة مواهب ناشئة من Nierstichting.
يشكر المؤلفون بكل امتنان جامعة مورسيا (UM) وجامعة مورسيا الكاثوليكية (UCAM) على توفير الوصول إلى منشآتهم التي تم فيها تسجيل لقطات الفيديو.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| لوحة qPCR ببئر 384 | أنظمة حيوية تطبيقية | 4309849 | |
| الطرد المركزي | أورتوالريسا | Biocen22R | |
| الكلوروفورم | VWR | 0757-500ML | |
| DMEM/F12 | جيبكو | 21331020 | |
| عامل نمو البشرة | سيغما-ألدرتش | E9644 | |
| الإيثانول | PanReac AppliChem | 141086.1214 | |
| FCS | بيوويست | S181B-500 | |
| كتلة التدفئة | إبندورف | ثيرموميكسر C | |
| الهيدروكورتيزون | سيغما-ألدرتش | H0135 | |
| حاضنة نقص الأكسجين | ميمرت | ICO 50med | |
| IFN-& غاما؛ | ProspecBIo | CYT-358 | |
| الحاضنة | ميمرت | ICO 105 | |
| إيزوبوبانول | VWR | 0918-1L | |
| إنها | جيبكو | 41400045 | |
| إل-جلوتامين | جيبكو | 25030081 | |
| الماصة متعددة القنوات | إبندورف | 3125000052 | |
| حاضنة غير CO2 | |||
| بادئات PCR | يوروفينس جينومكس | ||
| البنسلين - ستريبتوميسين | جيبكو | 15140-122 | |
| qPCR Master Mix | NZYTech | MB22303 | |
| نظام qPCR في الوقت الحقيقي | أنظمة حيوية تطبيقية | كوانتستوديو 5 | |
| النسخة العكسية من الماستر ميكس | NZYTech | MB12502 | يحتوي على خليط الإنزيم |
| ماء خال من RNAse | هايكلون | SH3053802 | |
| مجموعة اختبار إجهاد الميتو من Seahorse XF Cell | أجيلينت | 103015-100 | يحتوي على أوليغوميسين، FCCP، أنتيميسين A وروتينون |
| سي هورس XF DMEM متوسط | أجيلينت | 103575-100 | |
| سي هورس XF جلوكوز | أجيلينت | 03577-100 | |
| سي هورس XF جلوتامين | أجيلينت | 103579-100 | |
| سيهورس XF بيروفيتي | أجيلينت | 103578-100 | |
| محلل Seahorse XFe96 | أجيلينت | S7800BR | |
| سي هورس XFe96 فلوكس باك | أجيلينت | 103792-100 | يحتوي على لوحة ميكرولوح لزراعة الخلايا XFe96 وخرطوشة مستشعر XFe96 |
| دورة حرارية | بيو-راد | T100 Thermal Cycler | |
| تراييودوثيرونين | سيغما-ألدرتش | T5516 | |
| تريزول | إنفيتروجين | 15596026 | |
| مطياف الفوتومتر UV-Vis | دي نوفيكس | DS-11 |
المراجع
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
إعادة الطباعة والأذونات
