يوضح هذا البروتوكول اختبارا كميا للتغوط في الطافرة الشابة من نوع RAC1/CED-10 المعروفة بالتهاب الكاينورهابديتس إليغانس، مما يوفر نموذجا بسيطا لدراسة مراحل مرض باركنسون التمهيدية المبكرة. يتغلب على قيود نماذج الأخرى ويسهل اختبار استراتيجيات علاجية تستهدف أمراض باركنسون المبكرة.
مقالة منهجية
تقييم حركة الجهاز الهضمي في طفرات التهاب القيء المبكر RAC1 /CED-10 كأداة لدراسة مرض باركنسون المبكر
في هذه المقالة
ملخص
الملخص
مرض باركنسون (PD) هو من أكثر الاضطرابات التنكسية العصبية شيوعا ويتم تشخيصه بناء على الأعراض الحركية التي تظهر بعد فقدان كبير للعصبون الدوباميني. الأعراض غير الحركية، مثل الإمساك، هي الأكثر شيوعا وغالبا ما تظهر مبكرا، مما يشير إلى بداية المرض. تستخدم العديد من النماذج الحيوانية لدراسة الأمراض التنكسية العصبية، لكن معظمها يركز على المراحل المتقدمة. ونظرا لصعوبة تحديد بداية التنكس العصبي بدقة، لا يوجد نموذج واحد يمثل تطور المرض بالكامل بالكامل. نماذج الثدييات تستغرق وقتا طويلا ومكلفة بشكل خاص بسبب دورات عمرها الطويلة. على النقيض من ذلك، يتيح كينورهابديتس إليغانس (C. elegans)، وهو دودة شفافة قطرها 1 مم ذات عمر ودورة تكاثر قصيرة (~3 أسابيع و3 أيام)، إجراء تجارب أسرع وفعالة من حيث التكلفة بفضل فترة تدعيله السريعة للجنيد. يتكون برنامج الحركيات في التغوط في C. elegans من دورات إيقاعية تنظمها شبكة جينية معقدة يشارك فيها Rho/rac GTPases، ويعد RAC1 (CED-10 في C. elegans) من بينها. لقد أظهرنا أن طفرات RAC1/CED-10 تظهر تشكلات ووظيفة GABAergic متأثرة، مما يؤدي إلى اضطرابات دورات التبرز. هنا، نقدم البروتوكول التجريبي لقياس الإمساك لدى C . elegans من نوع RAC1/CED-10 في المراحل المبكرة. بالإضافة إلى كونه أداة تنبؤية للتحقيق في أعراض باركنسون المبكرة قبل التنكس العصبي، يمكن أيضا استخدام هذا البروتوكول كنقطة نهاية مبكرة لتقييم فعالية التدخل الدوائي. ونظرا لأن هذه التغيرات ليست خاصة بمرض، نعتقد أن هذا النموذج يوفر أداة قيمة للتحقيق في التغيرات التي تظهر مبكرا في أمراض أخرى.
المقدمة
مرض باركنسون (PD) هو ثاني أكثر الاضطرابات التنكسية شيوعا وأحد الأسباب الرئيسية للإعاقة العصبية 1,2. تشمل علاماته المرضية أجسام ليوي وعصبيات ليوي، التي تتكون أساسا من α-سينوكلين، إلى جانب فقدان الخلايا العصبية في المادة السوداء ومناطق دماغية أخرى3.
سريريا، يصنف باركنسون كاضطراب حركة، لكنه يتميز أيضا بطف واسع من الأعراض غير الحركية. تنشأ الإعاقات الحركية من تنكس الخلايا العصبية الدوبامينية في المادة السوداء ونقص الدوبامين المخطط. ومع ذلك، غالبا ما تظهر الأعراض غير الحركية - مثل الإمساك والقلق واضطراب سلوك نوم حركة العين السريعة4 - قبل سنوات، خلال المرحلة الأولية، عندما يؤثر التنكس العصبي على البنى خارج الكابلين (مثل جذع الدماغ، الجهاز الشمي، والمسارات الذاتية)5.
أحد التحديات الرئيسية في أبحاث مرض باركنسون هو تأخر بداية الظهور السريري: حيث تظهر الأعراض الحركية عادة فقطبعد فقدان 60٪-80٪ من الخلايا العصبية الدوبامينية، وبحلول ذلك الوقت تصبح التدخل العلاجي أقل فعالية. الأعراض غير الحركية المبكرة (مثل خلل الوظائف الذاتية) قد تكون مؤشرات حيوية لاضطراب باركنسون6 الأولي، لكن عدم خصوصيتها يعقد التشخيص النهائي. نظرا لهذه القيود، فإن نماذج ضرورية لدراسة المراحل المبكرة لمرض باركنسون، وتوحيد توصيف الأعراض، وتطوير علاجات واقية عصبية—وهي غير موجودة حاليا—قد تبطئ أو تمنع التنكس العصبي.
RAC1/CED-10 متحورات C. elegans تعيد ملخص ميزات رئيسية في المراحل المبكرة والمتأخرة من مرض باركنسون6. لقد أثبتنا سابقا أن نشاط RAC1 ضروري لبقاء ووظيفة الخلايا العصبية الدوبامينية، حيث يحمي من السمية الناتجة عن α السينوكلين7. علاوة على ذلك، تظهر طفرات RAC1/CED-10 تغيرات ظاهرية تشبه مرض باركنسون المبكر، بما في ذلك اختلال أيض الدهون وخلل في وظائف GABAerg، وينعكس ذلك في دورات التغوطالمضطربة 6. تثبت هذه النتائج أن طفرات RAC1/CED-10 هي نموذج قابل للتطبيق لدراسة الفيزيولوجيا المرضية لمرض باركنسون قبل التنكس.
هنا، نصف اختبار تحسين التغوط لطفرات RAC1/CED-10، والذي يلتقط خلل الحركة في الأمعاء بشكل كمي، مما يمكن من دراسة منهجية لخصائص الجهاز الهضمي خلال مرحلة البرودرومال في مرض باركنسون.
البروتوكول
ملاحظة: نوع بري: N2 بريستول. نموذج المرض المبكر RAC1/CED-10: تم تصنيف السلالة BR3579 جيناتي: ced-10(n3246) وتسمى هنا RAC1/CED-10. كانت هدية سخية من الدكتور رالف بومايستر (جامعة ألبرت-لودفيغ، فرايبورغ/برايسغاو، ألمانيا). هذا النوع من ced-10 (n3246) هو أليل قوي. الطفرة ced-10(n3246) هي انتقال من G-إلى A يؤدي إلى تغيير في الجليسين 60 من CED-10 إلى الأرجينين (G60R)، مما يؤدي إلى تغيير غير مفرغ في الوظيفة 8,9. شدة هذا الأليل أقوى مقارنة بأليلات Ced-10 الأخرى10. تم استخدام الخنثى طوال الدراسة.
1. صيانة الديدان
- صب 25 مل من وسط نمو الديدان الخيطية (NGM) في أطباق بتري بحجم 150 مم ودع الأجار يتصلب. زرع كل لوح ب 500 ميكرولتر من زراعة الإشريكية القولونية OP50، مع توزيع التعليق بالتساوي على سطح الأجار. حضانة الصفائح عند 30 درجة مئوية طوال الليل للسماح بنمو البكتيريا. جهز الألواح قبل 24 ساعة من الاستخدام.
2. الحصول على تزامن الديدان في المرحلة الرابعة من تطور اليرقات (L4)
- إجراء قياسات لحركة الأمعاء باستخدام ديدان متزامنة في مرحلة نمو يرقات L4. للحصول على الديدان في هذه المرحلة من التطور، اتبع بروتوكول التبييض الموضح أدناه (مقتبس من 11) مع تعديلات طفيفة تتعلق بالنمط الظاهري RAC1/CED-1011.
- أضف 10 حشرات بالغة حوامل إلى أطباق NGM مع إشريكيا كولي OP50، المحضرة كما في الخطوة الأولى، لوضع البيض والسماح للديدان بالنمو لمدة 3 أيام. بدلا من ذلك، نقل قطعة من الأجار من صفيحة NGM تحتوي على مجموعة مختلطة إلى صفيحة NGM جديدة. في هذه الحالة، التحكم في دورة الحياة ليس دقيقا كما هو الحال عند استخدام 10 بالغين حاملين. بعد 80 ساعة، لوحظ وجود تجمع مختلط من خنثى C elegans مع بالغين حوامل في حالة الأنواع البرية. أظهر طفرات RAC1/CED-10 6 ساعات من تأخر النمو6، لذا ظهر البالغون الحاملون عند 86 ساعة.
ملاحظة: يتم تحديد البالغين الحوامل لأن لديهم بويضات بداخلها. - غسل أطباق تحتوي على 10 مل من M9 لاستعادة البالغين الحوامل في أنابيب بحجم 15 مل (موسوم بالنمط الجيني المقابل).
- قم بإزالة الديدان بالطرد المركزي لمدة دقيقتين عند 2000 × جرام (~1500 دورة في الدقيقة على جهاز طرد مركزي قياسي على الطاولة) في درجة حرارة الغرفة، تخلص من السوبرناتينت، وأضف 10 مل من مخزن M9 الطازج.
ملاحظة: رغم أنه يعمل في درجة حرارة الغرفة، لاحظنا نتائج أفضل من خلال الطرد المركزي عند 10 درجات مئوية. - قم بتنفيذ الخطوة 2.4 ثلاث مرات أو حتى يظهر المخزن الخارجي خاليا من البكتيريا (الفائق الشفاف). يمكن استنتاج وجود البكتيريا من حقيقة أن المادة الفائقة تبدو مائلة للصفراء وعكرة قليلا.
- أضف مخزن M9 إلى حجم إجمالي 3.5 مل.
ملاحظة: من خلال تجربتنا، يمكن استخدام الماء المقطر المعقم - أو حتى ماء الصنبور - في هذه المرحلة دون إحداث تلوث، حيث أن عملية التبييض اللاحقة تقضي على أي ميكروبات. ومع ذلك، نوصي باستخدام مياه M9 العازلة أو المياه المعقمة لضمان قابلية التكرار عبر المختبرات. - اخلط 0.5 مل من 5M NaOH مع 1 مل من المبيض لتحضير محلول التبييض. اجعل هذا المحلول طازجا قبل الاستخدام مباشرة. أضف 1.5 مل من الخليط إلى أنبوب الطرد المركزي الذي يحتوي على الديدان.
- حرك الأنابيب بقوة أثناء التبييض أثناء مراقبة تدمير الأنسجة البالغة تحت مجهر تشريح. أوقف رد الفعل بمجرد أن تبقى آثار البالغين مرئية فقط.
ملاحظة: علاج التبييض يقضي على الديدان واليرقات البالغة، بينما تبقى الأجنة صالحة لأن قشرة البيض تحميها من المبيض. هذه الخطوة ضرورية للحصول على ناجين. الوقت الزائد قد يقتل جميع الديدان. استخدام دوامة موصى بها بشدة، لكن بعد ذلك، تحقق من تدمير الجلد كل 3 دقائق. طفرات RAC1/CED-10 أكثر حساسية للمبيض. راقب تفكك الأنسجة البالغة كل دقيقتين ولا تتجاوز 8 دقائق أبدا. - أوقف التفاعل بإضافة مخزن M9 لملء الأنبوب (~15 مل). قم بالطرد المركزي بسرعة (لأن العلاج قد لا يزال نشطا) لمدة دقيقة واحدة عند 2000 × جرام وتخلص من السوبرناتانت.
- اغسل الحبيبة ثلاث مرات عن طريق ملء الأنبوب بمخزن M9 والطرد المركزي كما هو موضح أعلاه. بعد الغسل النهائي، قم بإزالة المادة الفائقة بعناية حتى يبقى حوالي 0.1 مل.
- أضف هذه إلى أنبوب جديد بسعة 15 مل ثم أضف M9 إلى 5 مل. حضن في درجة حرارة الغرفة مع تدوير لطيف. يجب توفير تهوية مناسبة.
ملاحظة: حصلنا على نتائج تزامن جيدة باستخدام ماء الصنبور بدلا من M9 في جميع الخطوات باستثناء الخطوة 2.9. - بعد 24 ساعة، أوقف الدوران، وقم بإطلاق الديدان بالطرد المركزي عند 2000 × جرام لمدة دقيقة واحدة عند 10 درجات مئوية.
- طبق 30-50 ميكرولتر من الديدان المثقلة بالحبيبات من الأنماط الجينية المقابلة في صفائح NGM بقطر 150 سم مزروعة ب OP50 وموسوم بالنمط الجيني المقابل. بدت عدة ديدان من نوع RAC1/CED-10 ميتة، كخاصية جوهرية في النمط الجيني RAC1/CED-10 (ملاحظة شخصية). وبناء عليه، قم بتحميل حجم مضاعف من هؤلاء المتحولين ومراقبتهم في اليوم التالي.
ملاحظة: حجم الديدان المغطاة يعتمد على عائد بروتوكول التبييض. لا تتجاوز أبدا عدد 250 دودة في كل طبق، لأن الطعام سينفد أسرع، وقد تدخل الديدان في حالة جوع. يمكن استخدام الفرق في وقت التطور بحكمة لتسجيل الدورات الأولى للتغوط لديدان النوع البري ثم RAC1/CED-10 (انظر القسم التالي). - تحقق من وجود ديدان برية في مرحلة L4 من تطور اليرقات بعد 34 ساعة من الحضانة. سيتم تحقيق نفس مرحلة التطور لديدان RAC1/CED-10 خلال 40 ساعةو6 سنوات. تمييز ديدان L4 عن L3 والبالغين الصغار بقياس حجمها (~650 ميكرومتر) وفحص بنية فرجها الشبيهة بالقمر12.
3. تسجيل حركة الأمعاء
- اغسل الألواح ب 3 مل من M9 لاستعادة ديدان L4 في أنبوبين طرد مركزي بسعة 1.5 مل.
- الطرد المركزي عند 2000 × g لمدة دقيقة واحدة (الشكل 1A)، تخلص من الفائق وأضف 1 مل من مخزن M9 الجديد. كرر الخطوة 3 مرات.
- ضع هذه الديدان المغسولة في صفيحة NGM بدون OP50 (الشكل 1B). مع هذه الخطوات الغسيل ووضع الطلاء النهائي، تخلص من البكتيريا الزائدة.
- نقل الديدان بشكل فردي إلى صفائح ب 12 بئر تحتوي على 5 ميكرولتر من بكتيريا OP50 المزروعة (الشكل 1C). اسمح للديدان بالتكيف لمدة ساعة واحدة عند 20 درجة مئوية.
ملاحظة: تم زرع هذه الأطباق بذرها وتركها لتجف قبل إضافة الديدان. من الأفضل عدم تحضير هذه الألواح مسبقا لأن النمو الزائد للبكتيريا قد يجعل تصور دورة التغوط صعبا. - ضع صفائح ال 12 بئر مع الديدان تحت المجهر، حدد موقع دودة واحدة، وابدأ التسجيل. سجل دورات التغوط لمدة 15 دقيقة (15 دورة؛ الشكل 1D). استخدم هدف 5x للتصوير مع كاميرا توفر دقة 12-بت ومعدل إطارات 60 إطارا في الثانية. قم بالحصول على الفيديو باستخدام أداة القص في ويندوز. ابدأ التسجيل عندما تكتشف أول دورة تبرز.
ملاحظة: إذا كان المجهر متصلا بجهاز كمبيوتر، يمكنك تسجيل الشاشة مباشرة باستخدام أداة القص. نوصي بشدة باستخدام كرونومتر كمبيوتر لمراقبة دورة التغوط. اضغط على زر اللفات في كل مرة في نهاية دورة التغوط.
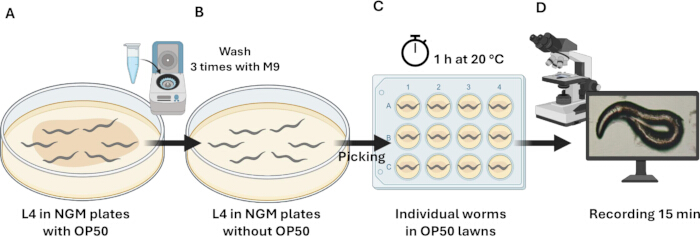
الشكل 1: مخطط تخطيطي للبروتوكول التجريبي لقياس حركة الأمعاء. (أ) الديدان المتزامنة في مرحلة L4 من التطور. تم جمع هذه الديدان وغسلها ثلاث مرات باستخدام M9. (ب) تم طلاء الديدان المغسولة في صفائح NGM بدون OP50. (ج) تم قطف الديدان بشكل فردي في صفيحة ب 12 بئر مع OP50 وتركها تزحف لمدة ساعة واحدة عند 20 درجة مئوية. خلال هذه الفترة، تتكيف الديدان مع الوسائط الجديدة وتسترخي من ضغط النقل. (د) تم تسجيل ديدان فردية لمدة 15 دقيقة لتحليل حركة الأمعاء. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
4. تحليل دورة التغوط
ملاحظة: في C. elegans، يتكون برنامج الحركية للتغوط من دورات إيقاعية تنظمها شبكة جينية معقدة. يتكون هذا البرنامج من ثلاث انقباضات عضلية متتالية ومميزة، كل منها يمكن اكتشافه بسهولة تحت مجهر التشريح. الخطوة الأولى تتضمن انقباض عضلات جدار الجسم الخلفي (pBoc)، تليها انقباض عضلات جدار الجسم الأمامي (aBoc)، وأخيرا انقباضات العضلات المعوية (EMC)، والتي تؤدي إلى طرد محتويات الأمعاء (Exp)13 (الشكل 2).
- إجراء تجارب عند 20 درجة مئوية. بمجرد تسجيل جميع الفيديوهات، ابدأ تحليل البيانات.
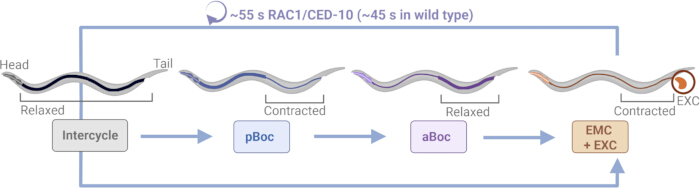
الشكل 2: دورة التغوط لدى طفرات C. elegans RAC1/CED-10. تمثيل تخطيطي لدورة تبرز C. elegans في الديدان الخيطية الطفرة RAC1/CED-10. pBoc يرمز إلى انقباض عضلات جدار الجسم الخلفي؛ يشير aBoc إلى انقباض عضلات جدار الجسم الأمامي، ويشير EMC + EXC إلى قذف محتويات الأمعاء. في البرية التي تتغذى عليها غير مضطربة، يتم إطلاق هذا البرنامج الحركي كل 45 ثانية بانتظام عالجدا 18 ثانية. الديدان موجهة بحيث يكون الرأس متجه نحو اليسار والذيل إلى اليمين. يتم تمييز الإفرازات (EXC) باللون البرتقالي. تم تعديل هذا الرقم من6. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
5. تحليل الفيديو
- افتح فيديو واحد باستخدام برنامج مشغل فيديو.
ملاحظة: استخدمنا Windows Media Player Legacy v12. يمكن استخدام برامج مشغل فيديو أخرى. - جهز ملف جدول البيانات. افتح ملف القالب المرفق (الجدول التكميلي 1). أدخل اسم ملف الفيديو وحجم الدودة (اختياري) في الحقول المخصصة، ثم ابدأ تشغيل الفيديو.
- حدد وسجل أول إخراج. عرف الوقت صفر بأنه تسجيل اللحظة التي يبدأ فيها عندما توضع الديدان تحت المجهر. راقب منطقة الشرج في الدودة وحدد أول حدث إخراج. سجل الوقت (بوحدة s) لهذا الحدث في الخلية المسماة أول إخراج من جدول البيانات.
ملاحظة: سيختلف وقت الإخراج الأول بين الديدان (مثلا، الدودة 1 = 5 ثوان، الدودة 2 = 26 ثانية، الدودة 3 = 34 ثانية) لأن توقيت آخر إخراج قبل التسجيل غير معروف. - سجل أحداث الإخراج اللاحقة: استمر في التشغيل ووثق كل إخراج لاحق بشكل متسلسل (الإخراج 2، الإخراج 3، إلخ) حتى يتم إدخال 16 إخراجا.
- حساب فترات الدورة: يحدد القالب تلقائيا الفترة بين الإفرازات المتتالية (مثلا: الإخراج 2 - الإخراج 1؛ الإبرازات 3 - الإبرازات 2؛ ...). استخدم هذه الفترات كطول دورة.
- تحديد إجمالي مدة الدورة: بمجرد تسجيل الأحداث الستة عشر، يحسب القالب الوقت اللازم لإكمال الدودة ال 15 دورة. يتم عرض هذه القيمة في الخلية المسماة بالوقت الكلي في جدول البيانات. كرر هذه العملية لكل دودة.
ملاحظة: حاليا، لا يوجد برنامج آلي يكتشف بشكل موثوق دورات التغوط في C. elegans. على الرغم من أن منصات مثل WMicrotracker فعالة في قياس معايير الحركة (السرعة، المسافة المقطوعة، عدد الدودة، أو حجم الجسم14,15)، إلا أنها لا توفر الدقة اللازمة لمراقبة منطقة الشرج وتحديد أحداث الانقباض أو الإخراج. لذلك، يبقى التقييم اليدوي ضروريا، مشابها للقيود التي لوحظت في اختبارات ضخ البلعوم16.
6. قياسات طول الدورة
- يحسب طول الدورة بأنه الوقت بين إفرازين متتاليين. احسب بطرح زمن نهاية دورة واحدة من زمن نهاية الدورة التالية، كما هو موضح في الجدول 1 والمعادلة 1.
طول الدورة (n) (بالثواني) = الإخراج الزمني (n+1) - الإخراج الزمني (n) المعادلة 1
طول الدورة (1ثانية) = 66 ثانية ((الإخراج الزمني 2 = 71 ثانية) - (الإخراج الزمني 1 = 5 ثوان)) - لكل مجموعة بيانات، احسب متوسط فترة دورة التبرز، والانحراف المعياري (SD)، والخطأ المعياري للمتوسط (SEM) باستخدام برنامج تحليل إحصائي.
7. إيقاع أو انتظام دورة التغوط
- يستخدم معامل التباين (CV) لوصف التباين النسبي وشرح كيفية توزيع البيانات مقارنة بالمتوسط. وقد استخدم سابقا كمؤشر على انتظام دورة التغوط لدى C. elegans6. احسب CV لكل دودة بتطبيق المعادلة 2.
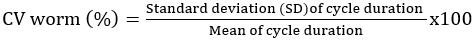 المعادلة 2
- لكل سلالة C. elegans ، احسب متوسط CV، والانحراف المعياري (SD)، والخطأ المعياري للمتوسط (SEM) باستخدام برنامج تحليل إحصائي.
8. التحليل الإحصائي
- أجر تجارب في ثلاث نسخ مستقلة، مع تحليل خمسة ديدان لكل حالة. قيم طبيعية البيانات باستخدام اختبار شابيرو-ويلك (α=0.05)، والذي يوصى به ل n < 50.
- ونظرا لأن قياسات طول الدورة لم تتبع توزيعا طبيعيا، تم إجراء التحليل باستخدام اختبار مان-ويتني غير المقياسي، وهو مناسب جيدا لاكتشاف الفروق في الوسطيات ذات أحجام العينات الصغيرة. وعلى العكس، يتم توزيع بيانات CV (٪) عادة؛ حللها باستخدام اختبار t غير مقترن مع تصحيح ويلش لأخذ التباين غير المتساوية في الاعتبار.
- قم بإجراء جميع التحليلات الإحصائية باستخدام برامج التحليل الإحصائي. بالنسبة للتجارب التي تشمل أكثر من سلالين، تطبيق اختبار بديل مثل تحليل التفريغ الأحادي الاتجاه، مع التحقق المستمر من توزيع العينة.
النتائج
تم تنفيذ الاختبار المعتمد على الفيديو الموصوف في نموذج C. elegans RAC1/CED-10 لمرض باركنسون المبكر لتقييم حركة الأمعاء بشكل كمي. نظرا لتأخر النمو لدى طفرات RAC1/CED-10، تم تعديل التجمعات المتزامنة لضمان مقارنات مطابقة للمراحل مع الضوابط من النوع البري. تم تسجيل ديدان فردية في المرحلة L4، وتم تحليل 15 دورة تغوط متتالية لتحديد طول الدورة وانتظامها. يتيح هذا النهج قياسا دقيقا وعالي الدقة لوظيفة الحركة المعوية ويسمح بالكشف عن التغيرات غير الحركية الدقيقة المرتبطة بأنماط باركنسون المبكرة في C. elegans.
تأخر النمو في RAC1/CED-10 للتجارب المتزامنة
نظرا للتأخير التطوري الذي لوحظ في متحول C. elegans RAC1/CED-106، تتطلب تجارب التزامن التي تجرى بالتوازي مع البرية تعديلا زمنيا. ولمراعاة هذا التأخير وضمان المقارنات المطابقة للمراحل أثناء تسجيل الفيديو، تم طلاء RAC1/CED-10 قبل 6 ساعات من عناصر التحكم البرية في نفس اليوم.
ديدان RAC1/CED-10 لدراسة تغيرات التغوط المرتبطة بمرض باركنسون
يمكن اكتشاف الإمساك قبل تشخيص مرض باركنسون الحركي قبل عقدين تقريبا، مما يجعله أحد العلامات المعروفة الأولى التي تشير إلى بداية المرض17. لقد أظهرنا سابقا أن نموذج RAC1/CED-10 يظهر تغيرات غير حركية في مرحلة التطور L4، قبل بداية التنكس العصبي6، وتغير حركة الأمعاء هو أحد هذه التغييرات. كما هو موضح في البروتوكول، تم تسجيل ديدان فردية في المرحلة الرابعة. يظهر الشكل 3 دودة تمثيلية من نوع RAC1/CED-10.
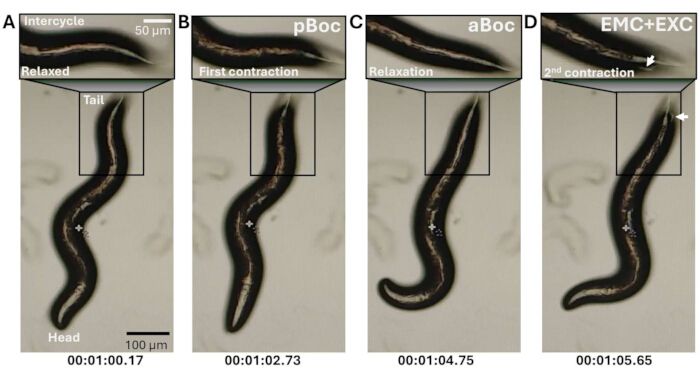
الشكل 3: دورة تبرز C. elegans في صور للحيوانات المتحولة RAC1/CED-10. دورة التغوط في متحولين RAC1/CED-10 في الصور. الديدان موجهة رأسا للأسفل. تظهر مناطق الذيل، المميزة في الصناديق الأفقية، تسلسل خطوات التغوط الحركية كما هو موضح في6 والمخططات في الشكل 2: (أ) المسار الأمامي المسترخي، (ب) انقباض الجسم الخلفي (pBoc)، (ج) انقباض الجسم الأمامي (aBoc)، و(د) انقباض العضلات المعوية مع الطرد (EMC+EXC). مدة الدورة موضحة أدناه. الأسهم تضع علامة على المواد المطرودة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
المعاملتان المستخدمتان لتحليل حركة الأمعاء هما طول الدورة وانتظامية الدورة13. أولا، قمنا بقياس 15 دورة لكل دودة، كما هو موضح في الشكل 4.
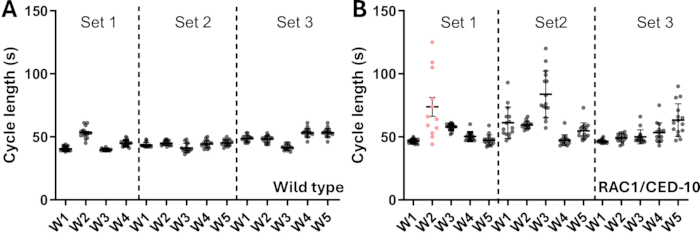
الشكل 4: مدة دورة الأنواع البرية (A) وأنواع RAC1/CED-10 (B). المجموعات 1 و2 و3 تشير إلى النسخ المستقلة. كل نقطة تمثل دورة تبرز واحدة، وهناك 15 دورة لكل دودة. تم التخلي عن W2 الوردي في B لمزيد من التحليل لأنه لم يكمل 15 دورة. W = دودة. لم يتم إجراء تحليل إحصائي في هذا الشكل. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
تم تعيين الديدان الفردية ب W (W1، W2، إلخ) عبر النسخ التجريبية المختلفة (المجموعة = 1، 2، 3). لكل دودة (W)، تم إجراء 15 قياسا خلال 15 دقيقة. في المجموعة الأولى من التجارب على البرية (الشكل 4A، المجموعة 1)، تم استبعاد دودة واحدة لأنها كانت شابة بالغة بدلا من L4. في حالة RAC1/CED-10، تم التخلص من دودة واحدة لأنها بعد معالجة البيانات لم تكمل 15 دورة خلال 15 دقيقة. لذلك، نوصي باستخدام تطبيق الساعة لمعرفة عدد الدورات التي تم إكمالها، حيث كانت ديدان RAC1/CED-10 غير منتظمة إلى حد ما.
استنادا إلى هذه القيم الفردية، تم حساب متوسط وانحراف معياري طول الدورة للديدان البرية وطفرات RAC1/CED-10 (الجدول 1 والشكل 5). كما تم النشرسابقا في 6، تظهر ديدان RAC1/CED-10 دورات أطول وأقل انتظاما من الديدان البرية. تظهر الديدان البرية دورات أقصر (46 ثانية ± 5 ثوان) مقارنة بمتحولين RAC1/CED-10 (55 ثانية ± 12 ثانية).
الجدول 1: مجموعة بيانات ممثلة لقياسات دورة الإخراج للديدان الفردية. يلخص الجدول البيانات الممثلة التي جمعت من ثلاثة. لكل دودة، تتضمن مجموعة البيانات معرف ملف الفيديو، حجم الجسم (ميكرومتر)، نقاط زمنية (بالثانية) المقابلة لأحداث الإخراج الفردية، أطوال الدورة المحسوبة عبر 15 دورة متتالية، وإجمالي مدة التسجيل. تم الحصول على طول الدورة بطرح نقاط زمن الإخراج المتتالية (مثلا، بالنسبة للدودة VID_154028، كان طول الدورة الأولى 66 ثانية، محسوبا ب 71-5 ثوان). توضح الإدخالات المتبقية قياسات مماثلة لدودتين إضافيتين، مما يوفر أمثلة على التغيرات النموذجية داخل مجموعة البيانات. يرجى الضغط هنا لتحميل هذا الجدول.
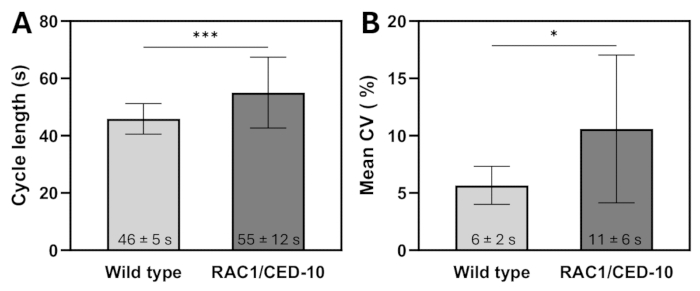
الشكل 5: معلمات دورة التبرز. (أ) طول دورة التغوط و(ب) متوسط الطول المتوسط لديدان النوع البري وديدان RAC1/CED-10. تمثل البيانات متوسط ± SD. N=3 n=5. تم تطبيق اختبار مان-ويتني غير المتري لطول دورة التبرز. تم تطبيق اختبار t غير مقترن بتصحيح ويلش لبيانات متوسط الرؤية القلبية. p < 0.001 * p < 0.05. راجع الخطوة 8 للحصول على معلومات التحليل الإحصائي. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
يتم حساب انتظام الدورة باستخدام متوسط معامل التباين (CV)، وهو متوسط معاملات التغير لكل دودة في التجربة18. يظهر الشكل 5B تباينا أكبر في المتحولة RAC1/CED-10 مقارنة بالحيوانات البرية. متوسط CV هو 6٪ ± 2٪ في الأنواع البرية، مقارنة ب 11٪ ± 6٪ في طفرات RAC1/CED-10.
الجدول الإضافي 1:قالب لحساب طول دورة التغوط في Caenorhabditis elegans. يجب على المستخدمين إدخال اسم كل ملف دودة في العمود الأول ويمكنهم اختيار تسجيل طول جسم الدودة. يتم إدخال الوقت (ب s) المقابل لكل حدث إخراج (الإخراج 1-16) بالتسلسل، كما هو محدد من تشغيل الفيديو. يقوم القالب تلقائيا بحساب الفترة بين الإفرازات المتتالية (الإخراج الزمني N - الإخراج الزمني N-1)، مما يمثل طول دورة التبرز. بمجرد إدخال 16 حدث إخراج، يتم حساب الوقت الكلي المطلوب لإكمال خمسة عشر دورة كاملة تلقائيا وعرضه في خلية الوقت الكلي (mm:ss). يرجى الضغط هنا لتحميل هذا الملف.
المناقشة
C. elegans كنموذج قوي لدراسة مرض باركنسون التمهيدي
بينما تركز معظم نماذج الأمراض التنكسية العصبية على علم الأمراض في المرحلة المتأخرة19، لا يزال دراسة بداية المرض المبكرة تحديا تقنيا. النماذج الثديية التقليدية، مثل الفئران والجرذان أو الرئيسيات، مقيدة بدورات حياة طويلة وتكاليف عالية. تتغلب الدودة المجهرية C. elegans على هذه القيود من خلال عمرها البالغ 3 أسابيع، ودورة تكاثرها التي تستغرق 3 أيام، وقابليتها الوراثية - مما يجعلها نظاما مثاليا للدراسات الفعالة وواسعة النطاق للتنكس العصبي6.
يوفر الطفرة C. elegans RAC1/CED-10 ثلاث مزايا رئيسية لدراسة المرض المبكر لمرض باركنسون. أولا، تسمح دقة التوقيت الدقيق بتتبع الأحداث التنكسية العصبية عبر مراحل تطورية محددةجيدا 6. ثانيا، يقدم النموذج مرونة تجريبية استثنائية من خلال قابلية التحليل الجيني، ومتطلبات صيانة منخفضة، وتوافق عالي الإنتاجية 6,7. ثالثا، لأن C. elegans يفتقر إلى نظير α-سينوكلين داخلي، بما في ذلك في نموذج RAC-1/CED-10، فإنه يوفر ميزة قيمة. يمكن للباحثين دراسة آليات المرض قبل السريري في باركنسون دون تداخل α السينوكلين، مما يحدد المراحلالسادسة الأكثر تقدما. وهذا يضع النموذج كأداة ممتازة لدراسة الأحداث الممرضة الأولية ولدمج تعبير α-السينوكلين لاحقا للتحقيق في المرض المتقدم. أخيرا، يضمن الحفظ التطوري لتجانس CED-10 مع RAC1 البشري الصلة المباشرة بالترجمة10,20.
نموذج C. elegans الموضح هنا مناسب جدا للاختبارات الدوائية17,21. نظرا لأن طفرات RAC-1/CED-10 تظهر تأخر في التطور، فإن العمى غير ممكن في الخطوة الأولى، حيث لا يمكن إخفاء هويتهم مقارنة بالنوع البري. ومع ذلك، يمكن تقليل التحيز في الفحوصات الدوائية، من خلال اعتماد تصميم مزدوج التعمية حيث يبقى المجرب الذي يجمع البيانات والشخص الذي يحللها غير مدركين لجميع المتغيرات التجريبية.
يؤثر الإمساك على معظم مرضى باركنسون خلال المرحلة الأولية، وغالبا ما يسبقالأعراض الحركية. يقدم C. elegans مزايا فريدة لدراسة هذا الخلل المبكر في الجهاز الهضمي. على عكس نماذج الثدييات التي تتطلب تدخلات غازية، تتيح شفافية وبساطة الدودة المراقبة غير الجراحية والمباشرة لبرنامج حركتي التغوط النمطية - وهي ميزة حاسمة لقياس عيوب حركة الأمعاء. تمكن دورة الحياة القصيرة والإيقاع الدقيق للتغوط في C. elegans من تحليل سريع وقابل للتكرار للإعاقات الوظيفية. في طفرات RAC1/CED-10، تعكس الانحرافات في توقيت التغوط الأنماط الظاهرية الشبيهة بالإمساك في مرض باركنسون6. توفر هذه النتائج إطارا أساسيا للتحقق لاحقا في الثدييات المعقدة (مثل الفئران، الرئيسيات) مع ربط إشارات RAC1 مباشرة بخلل الأمعاء.
بعيدا عن أهميته الميكانيكية، يقدم نموذج RAC1/CED-10 أيضا فائدة انتقالية. اختبار التغوط بسيط وقابل للتكرار وقابل للتوسع، مما يجعله مناسبا لفحص المخدرات في مراحلها المبكرة. يمكن إعطاء الأولوية بسرعة للمركبات التي تحدد توقيت الدورة أو انتظامها للاختبار في نماذج الثدييات، مما يوفر مرشحا فعالا من حيث التكلفة للمرشحين العلاجيين. نظرا لأن خلل الجهاز الهضمي شائع في عدة حالات تنكسية عصبية4، فقد يستخدم هذا الاختبار أيضا خارج نطاق مرض باركنسون، ليعمل كأداة اكتشاف وجسر انتقالي للأبحاث ما قبل السريرية.
خطوات حاسمة في البروتوكول
نقدم منهجية محسنة لدراسة خلل الحركة في الأمعاء لدى طفرات RAC1/CED-10، وهي نمط ظاهري غير حركي رئيسي مرتبط بمرض باركنسون التمهيدي. بينما يستند هذا البروتوكول إلى اختبارات التغوط المعتمدة18,22، يعالج التحديات الفريدة التي تفرضها طفرات RAC1/CED-10 لضمان نتائج قوية وقابلة للتكرار.
التعديلات الرئيسية لمتحولين RAC1/CED-10 هي كما يلي:
تعديلات التزامن: تظهر طفرات RAC1/CED-10 خصوبة أقل مقارنة بالسلالات البرية (ملاحظة شخصية). لتعويض انخفاض الإنتاجية، تطبيق التعديلات التالية أثناء التزامن: طريقة قطع الصفائح - استخدم لقاح أكبر، تقريبا ضعف الحجم المستخدم في السلالات البرية، لمراعاة زيادة التباين في النمو. طريقة البالغين الحاملين - نقل 15-20 بالغا (مقابل 10 القياسيين) لضمان عدد كاف من الأجنة للتجارب اللاحقة.
حساسية المبيض: تظهر الأجنة من طفرات RAC1/CED-10 حساسية متزايدة لمعالجة الهيبوكلوريت. لتقليل الضرر، قلل وقت التعرض للمبيض بنسبة 20٪-30٪ مقارنة ببروتوكولات النوع البري وتحقق من سلامة الجنين مجهريا بعد العلاج.
اعتبارات تأخير النمو: تنضج طفرات RAC1/CED-10 أبطأ من الديدان البرية10. لتحقيق التزامن الصحيح للتسجيلات، ابدأ تحليلات الفيديو مع الديدان البرية لتحديد مرجع زمني وتسجيل الطفرات في مراحل مورفولوجية مطابقة (مثل شكل الفرج) بدلا من العمر الزمني.
مبررات سير العمل: إجراء تجارب أولية مع النوع البري C. elegans يتحكم في التباين البيئي ويوفر مرجعا لإيقاعات التغوط الطبيعية. نظرا لتأخر النمو لدى طفرات RAC1/CED-10-10، يجب تعديل جداول التسجيل لإعطاء الأولوية للمقارنات المطابقة للمراحل (بدلا من مطابقة العمر فقط).
اعتبارات توقيت السلالة الخاصة: تتطلب التأخيرات التطورية لدى الطفرات جدولة تجريبية مرنة، مع التركيز على مطابقة مراحل النمو عبر الأنماط الجينية بدلا من الاعتماد فقط على العمر الزمني.
قيود نموذج الدودة الخيطية
بينما يفتقر C. elegans إلى التعقيد التشريحي وتكرار المسارات الموجود في الأنظمة الثديية - وهو قيد لبعض الدراسات الانتقالية - فإن بساطته مفيدة لفحص الوظائف البيولوجية المنفصلة. التركيز على حركة الأمعاء يستفيد من هذه القوة، حيث تسمح فسيولوجيا الديدان المبسطة بتحليل دقيق لمعايير وظيفية محددة. على الرغم من ضرورة الدراسات التكميلية للثدييات للتحقق العلاجي، إلا أن C. elegans يوفر منصة استثنائية للبحث الميكانيكي في العمليات البيولوجية المحفوظة21,23.
كما يفتقر نموذجنا إلى α السينوكلين الداخلي، وهو مفيد لدراسة مرض باركنسون المبكر قبل السريري، وهي مرحلة قد يظهر فيها الإمساك كعرض أولي3. يوفر طول دورة التغوط مقياسا موضوعيا وعالي الإنتاجية، لكنه يعكس جانبا واحدا فقط من خلل الجهاز الهضمي وليس مرتبطا بمرض.
بينما لا يلتقط هذا الاختبار التجمع التدريجي α السينوكلين، أو التنكس العصبي المعقد، أو الأمراض الجهازية المرتبطة بالعمر التي شوهدت في مرض باركنسون5 البشري، نلاحظ تغيرا في الوظائف الدوبامينية وGABAergic واضطراب إشارات Rac16، مما يبرز الأهمية الميكانيكية لهذا النموذج. لذلك، لا يزال ذا قيمة في تشريح الآليات العصبية المعوية المرتبطة بمرض باركنسون المبكر والمسارات المحفوظة.
الإفصاحات
المؤلفون ليس لديهم ما يكشفون عنه.
شكر وتقدير
تعترف A.M.J. بمنحة الدكتوراه (FPU18/05190) ضمن إطار دكتوراه التكنولوجيا الحيوية في جامعة برشلونة المستقلة. يعترف AL وAMJ بتمويل PID2021-122645OB-100 و PID2024-1576370B-100 من MCIN/AEI//10.13039/501100011033/FEDER "واحدة من السيطرة على أوروبا"؛ برنامج "سيفيرو أوتشوا" لمراكز التميز، في البحث والتطوير CEX2019-000917-S (FUNFUTURE)، CEX2023-001263-S (MATRANS42)، Generalitat de Catalunya 2021S00446، وبرنامج Horizon Europe للبحث والابتكار التابع للاتحاد الأوروبي بموجب اتفاقية منحة رقم 101057527 (NextGEM). تعترف EDC بالدعم من منحة APR-2024 (PMI24006)، الممولة من مؤسسة الدراسات العليا في علوم الصحة (FESS) ومؤسسة المعهد البحثي والابتكاري في علوم الحياة وسلامة كتالونيا (IRIS-CC).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 12 بئر صفائح متعدد الآبار من الثقافة، معالجة، معقمة | لاببوكس | CCPP-012-100 | |
| آغار | VWR | AAA10752-0E | إعداد ألواح NGM |
| باكتوبتون | VWR | 90000-264 | إعداد ألواح NGM |
| بليتش | أي منزل | لعملية التبييض | |
| CaCl2 | لابكم | CACH-02P-1K0 | إعداد ألواح NGM |
| الطرد المركزي سورفال ST8 | سورفال | 15194923 | |
| الكوليسترول | سيغما-ألدرتش | C8667-25G | إعداد ألواح NGM |
| الساعة | ويندوز | v 11.2503.4.0 | |
| الإشريكية القولونية OP50 | CGC | OP50 | |
| الإيثانول | بانريك | 131086.1214 | إعداد ألواح NGM |
| الحاضنة 20 ودرجة C | إيكوجين | CIR180 | |
| KH2PO4 | سيغما-ألدرتش | P0662 | لتحضير مخزن M9 |
| KPO4 | سيغما-ألدرتش | P5655 + P3786 | KH2PO4 + K2HPO4؛ إعداد ألواح NGM |
| MgSO4 | سيغما-ألدرتش | M7506 | لتحضير ألواح NGM؛ لتحضير مخزن M9 |
| المجهر | أوليمبوس | أوليمبوس BX51 | |
| Na2HPO4 | سيغما-ألدرتش | S9763 | لتحضير مخزن M9 |
| Na2HPO4 | سيغما ألدريتش | 7558-79-4 | لتحضير مخزن M9 |
| NaCl | سيغما-ألدرتش | S5886 | لتحضير ألواح NGM؛ لتحضير مخزن M9؛ LB |
| NaOH | سيغما-ألدرتش | 567530 | بالنسبة لعملية التبييض؛ LB |
| أداة القص في ويندوز | ويندوز | v 11.2504.42.0 | |
| التريبتون | كوندا | 1612 | LB |
| مستخلص الخميرة | كوندا | 1702 | LB |
المراجع
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
إعادة الطباعة والأذونات
