تقدم هذه الدراسة بروتوكولا لتقييم تأثيرات الكركمين على سلوك خلايا الورم الأرومي الشبكي من خلال تعديل مسار Wnt / β-catenin وتعبير miR-22.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة بحثية
التنظيم بوساطة miR-22 لإشارات Wnt / β-Catenin بواسطة الكركمين في الورم الأرومي الشبكي
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
الورم الأرومي الشبكي (RB) هو ورم خبيث شائع داخل العين يصيب الرضع والأطفال ، ومع ذلك لا تزال مسبباته الدقيقة ومسبباته غير مفهومة تماما. الكركمين ، وهو مادة البوليفينول النشطة بيولوجيا ، يمنع تطور الورم عن طريق التعديل بوساطة microRNA لسلسلة إشارات Wnt / β-catenin. هدفت هذه الدراسة إلى توضيح كيف يتوسط الكركمين آثاره المضادة للأورام في RB من خلال التحقيق في تنظيمه لتعبير miRNA-22 (miR-22) واستكشاف الآليات الجزيئية الأساسية. تم التعامل مع نموذجين للورم الأرومي الشبكي الذي تم التحقق من صحته (SO-RB50 / WERI-Rb-1) بالكوركمين بتركيزات متفاوتة. لتحديد تنظيم miR-22 لإشارات Wnt / β-catenin ، تم تحويل الخلايا المستهدفة إما باستخدام فيروس عدسي مقلد miR-22 أو فيروس عدسي تحكم غير وظيفي. تم إنشاء نماذج ورم Xenograft في الفئران باستخدام خلايا RB البشرية لمراقبة التأثيرات في الجسم الحي للكركمين على حجم الورم ، وتعبير miR-22 ، ومستويات بروتين Wnt / β-catenin. تم تقييم التكاثر الخلوي والغزو وموت الخلايا المبرمج باستخدام مقايسة التلوين المزدوج CCK-8 و Transwell و Annexin V-APC-PI ، على التوالي. تم تحديد مستويات miR-22 بواسطة RT-PCR ، وتم تحديد ملامح تعبير Wnt1 و β-catenin عن طريق تحليل اللطخة الغربية. أدى علاج الكركمين إلى انخفاض التكاثر والغزو في خلايا RB ، مع تعزيز موت الخلايا المبرمج ورفع تعبير miR-22. أدى تثبيط miR-22 إلى تقليل تأثيرات الكركمين على مسار إشارات Wnt / β-catenin. في دراسات xenograft ، قلل الكركمين بشكل كبير من حجم الورم وعزز تعبير miR-22 داخل الأورام ، مما أدى إلى قمع إشارات Wnt / β-catenin بشكل فعال. توضح هذه النتائج أن الكركمين يمنع تكاثر خلايا RB وغزوها مع تعزيز موت الخلايا المبرمج ، بوساطة ذلك بشكل أساسي من خلال تنظيم miR-22 والتثبيط اللاحق لمسار Wnt / β-catenin.
المقدمة
يشكل الورم الأرومي الشبكي (RB) ، وهو ورم خبيث لدى الأطفال مع عدوانية عالية تنشأ في أنسجة الشبكية ، تهديدا صحيا كبيرا ، خاصة للأطفال دون سن الخامسة. ترتبط الطفرات الجينية ، خاصة تلك التي تؤثر على جين RB1 ، ارتباطا وثيقا بتطور هذا المرض1. بالنظر إلى الانتشار الكبير للورم الأرومي الشبكي (RB) بين الرضع والأطفال ، إلى جانب حقيقة أنه يتم الإبلاغ عن ما يقرب من 9000 حالة جديدة سنويا ، في الغالب في البلدان منخفضة الدخل والبلدان النامية ، فإن الفهم الشامل لآليات المرض أمر حتمي لتطوير استراتيجيات علاجية فعالة وتحسين نتائج المرضى2. على مر السنين ، ركزت الأبحاث حول RB بشكل أساسي على التغيرات الجينومية ، وتحديدا في تعبير miRNA3. بالتأكيد ، ظهر miR-34a و miR-22 كلاعبين حيويين في تكوين الأورام في RB4،5. من بين هذه miRNAs ، أظهر miR-22 مشاركته في تكوين الأورام عبر أنواع مختلفة من السرطان6،7،8 ، مما يؤثر على الانتشار والغزو والهجرة6،9. علاوة على ذلك ، أشارت الأبحاث السابقة إلى انخفاض تعبير miR-22 في كل من خطوط خلايا RB للفأر والإنسان ، مما يسلط الضوء على دوره المحتمل في هذا المرض10.
الكركمين ، وهو كركمينويد رئيسي نشط بيولوجيا في جذور الكركم ، كان مكونا أساسيا في الطب التقليدي والمأكولات الآسيوية11. وقد حظي ملفه الدوائي الغني, بما في ذلك المضادة للأورام, المضادة للميكروبات, المضادة للالتهابات, مضادات الأكسدة, وآثار واقية من الأعصاب, اهتمام كبير في البحوث الطبية الحيوية 12,13,14. استكشفت العديد من الدراسات دورها المضاد للأورام في RB ، مما يسلط الضوء على تأثيره على مسارات الإشارات المختلفة ، بما في ذلك NF-κB15 و JAK / STAT16 و MRP117. بالمقارنة مع هذه المسارات التي تمت دراستها سابقا ، قد يوفر محور الكركمين-miR-22 / Wnt / β-catenin نهجا أكثر استهدافا وتحديدا ، مما قد يحسن الفعالية العلاجية ويقلل من التأثيرات غير المستهدفة.
اقترحت الدراسات السابقة أن الكركمين يحقق تأثيرات مضادة للأورام عن طريق تعديل محور مسار إشارات TET1 / Wnt / β-catenin في سرطان الخلايا الكبدية18 وخلايا سرطان القولون19. ومع ذلك ، لا يزال ما إذا كان الكركمين يمكن أن يمنع تطور الورم في خلايا RB من خلال التأثير على مسار إشارات Wnt / β-catenin غير معروف. أبلغت الدراسات الحديثة عن انخفاض تعبير miR-22 في خلايا الورم الأرومي الشبكي وسرطان الخلايا الحرشفية الفموية المرتبط بالتغيرات في نشاط مسار إشارات Wnt / β-catenin20،21. بالنظر إلى التطبيق العملي ، يظهر الكركمين نشاطا فعالا مضادا للأورام ضمن نطاق تركيز محدد (10-40 ميكرومتر في المختبر) 15،22 ويمكن إعطاؤه في الجسم الحي بخصائص دوائية يمكن التحكم فيها ، مما يسهل البحث الانتقالي. لذلك ، تهدف هذه الدراسة إلى إنشاء نموذج RB للتحقيق فيما إذا كان الكركمين يزيد من مستويات miR-22 وبالتالي يقلل من نشاط إشارات Wnt / β-catenin ، مما يوفر استراتيجية علاجية أكثر كفاءة وذات صلة سريريا مقارنة بأساليب تعديل NF-κB أو JAK / STAT أو MRP1 التقليدية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت مراجعة جميع الإجراءات المتعلقة بالحيوانات والموافقة عليها من قبل لجنة أخلاقيات ورعاية (AEWC) في مستشفى تيانجين للعيون (رقم الموافقة. NKYY-DWLL-2023-054). يتم سرد الكواشف والمعدات المستخدمة في جدول المواد.
1. ثقافة الخلية
تمت زراعة خلايا خطوط الورم الأرومي الشبكي البشري WERI-Rb-1 و SO-RB50 في وسط Eagle المعدل عالي الجلوكوز من Dulbecco المكمل بنسبة 10٪ مصل أبقار الجنين و 1٪ البنسلين الستربتومايسين. تم زرع الخلايا بكثافة مناسبة في قوارير الاستزراع والحفاظ عليها عند 37 درجة مئوية في جو مرطب يحتوي على ٪ ثاني أكسيد الكربون2. تم استبدال الوسط كل 2-3 أيام ، وتم تمرير الخلايا عند التقاء 70٪ -80٪ باستخدام الtrypsinization القياسي.
2. التجارب على
تم استخدام ما مجموعه 48 فأرا عاريا خاليا من مسببات الأمراض (4 أسابيع ، 16-18 جم). تم إيواء في أقفاص معقمة وجيدة التهوية بشكل فردي تحت تدفق هواء رقائقي مع ظروف بيئية خاضعة للرقابة تتراوح من 26 إلى 28 درجة مئوية ورطوبة نسبية 40٪ -60٪. تم تعقيم العلف والماء والفراش قبل الاستخدام. سمح للفئران بالوصول المجاني إلى الطعام والماء وتم تأقلمها لمدة أسبوع واحد قبل التجارب.
3. تجميع وعلاجها
تم استخدام خلايا WERI-Rb-1 و SO-RB50 التي تم نقلها بثبات إما بمحاكاة miR-22 أو تسلسل تحكم سلبي لتطعيم الورم. تم حصاد الخلايا في مرحلة النمو اللوغاريتمي ، وإعادة تعليقها في محلول ملحي معقم مخزن بالفوسفات ، وتعديلها على كثافة 5 × 10⁷ خلايا / مل. تم حقن كل فأر تحت الجلد ب 0.1 مل من المعلق في الطرف الأمامي الأيمن. تم تقسيم الفئران بشكل عشوائي إلى ست مجموعات (ن = 6 لكل مجموعة): مجموعة النموذج ، مجموعة الكركمين ، مجموعة تقليد miR-22 ، miR-22 مقلد + مجموعة الكركمين ، مجموعة التحكم السلبية miR-22 ، ومجموعة التحكم السلبية miR-22 + مجموعة الكركمين. في المجموعات التي تلقت الكركمين ، تم إعطاء الفئران حقن داخل الصفاق بمقدار 15 مجم / كجم من الكركمين مرة واحدة يوميا بدءا مباشرة من تلقيح الخلايا السرطانية. تلقت المجموعات المتبقية كميات متساوية من DMSO كتحكم في السيارة.
4. قياس وزن الورم وحجمه
كان معدل أخذ الورم حوالي 80٪ -90٪ في الفئران العارية xenografted. تم قياس حجم الورم أسبوعيا باستخدام الفرجار الرقمي ، حيث تم تسجيل أطول قطر على أنه طول (L) وأقصر قطر تم تسجيله على أنه عرض (W). تم حساب حجم الورم باستخدام الصيغة V = (L × W2) / 2. تمت مراقبة الفئران بانتظام لنمو الورم وحالته الصحية ، وتم تطبيق نقاط نهاية إنسانية إذا تجاوزت الأورام 1500 مم3 أو إذا أظهرت علامات الضيق أو فقدان الوزن. في نهاية الأسبوع 4 ، تم القتل الرحيم للفئران عن طريق استنشاق ثاني أكسيد الكربون2 متبوعا بخلع عنق الرحم لضمان الموت. تم تشريح الأورام ووزنها مباشرة بعد إزالتها.
5. تعداء microRNA
تم استخدام قليل النوكليوتيدات الاصطناعية ، بما في ذلك تقليد miR-22 ، والتحكم السلبي ، ومضاد miR-22 (معدل 20 ميثوكسي) ، والتحكم السلبي المضاد ل miR ، و siRNAs الخاصة ب Wnt1 ، والتحكم siRNA ، في تعديس. تم زرع الخلايا عند التقاء 70٪ -80٪ في ألواح من 6 آبار قبل يوم واحد من التعدي. تم إجراء النداء باستخدام كاشف قائم على الدهون وفقا لتعليمات الشركة المصنعة. لكل بئر ، تم تخفيف الأحماض النووية في وسط خال من المصل ودمجها مع كاشف التعداء بنسبة الموصى بها لتشكيل مجمعات ، والتي تم احتضانها لمدة 15-20 دقيقة في درجة حرارة الغرفة قبل إضافتها بالتنقيط إلى الخلايا في وسط كامل. الحجم النهائي لكل بئر كان 2 مل. بعد 6 ساعات من الحضانة عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 ، تم استبدال الوسط بوسط كامل طازج. تم الحفاظ على الخلايا لمدة 48 ساعة قبل المقايسات اللاحقة. تم تقييم كفاءة تعداء النداء عن طريق تفاعل البوليميراز المتسلسل الكمي في الوقت الفعلي. تم استخدام ثلاثة siRNAs مختلفة تستهدف Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3 '؛ si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'؛ si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCACAACAA-3') بشكل فردي أو كخليط متساوي الأضواء لتقليل التأثيرات غير المستهدفة.
6. مقايسة مجموعة عد الخلايا -8 (CCK-8)
تم زرع الخلايا في صفيحة 96 بئرا بكثافة 5 × 10³ خلايا لكل بئر في 100 ميكرولتر من الوسط الكامل وسمح لها بالالتصاق طوال الليل. بعد المعالجة بالتركيزات المحددة من الكركمين للمدة المحددة ، تمت إضافة 10 ميكرولتر من محلول العمل CCK-8 مباشرة إلى كل بئر. كانت الآبار التي تحتوي على وسط وحده بمثابة ضوابط فارغة. تم تحضين الألواح عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 لمدة 4 ساعات ، وبعد ذلك تم قياس الامتصاص عند 490 نانومتر باستخدام قارئ الصفيحة الدقيقة. تم حساب بقاء الخلية على النحو التالي:
الجدوى (٪) = 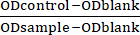 × 100
تم إنشاء منحنيات استجابة الجرعة ، وتم تحديد التركيز المثبط النصف الأقصى (IC50) للكركمين وفقا لذلك.
7. مقايسة ترانسويل
لمقايسة الهجرة ، تم تعليق الخلايا في وسط خال من المصل وزرعها في الغرف العلوية لإدخالات Transwell (حجم المسام 8 ميكرومتر) عند 3 × 10⁵ خلايا في 200 ميكرولتر لكل إدخال. تم ملء الغرف السفلية ب 600 ميكرولتر من الوسط الكامل الذي يحتوي على 10٪ من مصل أبقار الجنين كجاذب كيميائي. تم تحضين الصفائح عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 لمدة 24 ساعة. بعد الحضانة ، تمت إزالة الخلايا غير المهاجرة الموجودة على السطح العلوي للغشاء برفق باستخدام قطعة قطن معقمة. تم شطف الإدخالات مرتين بمحلول ملحي مخزن بالفوسفات ، مثبتة في 5٪ جلوتارالديهايد عند 4 درجات مئوية لمدة 30 دقيقة ، وشطفها مرة أخرى ، وتلطيخها ب 0.1٪ بنفسجي كريستالي لمدة 30 دقيقة في درجة حرارة الغرفة. تمت إزالة الصبغة الزائدة عن طريق الغسيل في برنامج تلفزيوني. سمح للأغشية بالجفاف في الهواء ، وتم تصور الخلايا المهاجرة تحت مجهر مقلوب بدرجة تكبير 400×. للقياس الكمي ، تم تصوير ثلاثة حقول عشوائية لكل إدراج ، وتم حساب متوسط عدد الخلايا.
8. مقايسة ANNEXIN V-APC-PI
تم حصاد الخلايا من كل مجموعة ، وغسلها مرتين باستخدام محلول ملحي مبرد مسبقا بالفوسفات (PBS) ، وتم طردها بالطرد المركزي عند 300 × جم لمدة 5 دقائق عند 4 درجات مئوية. تم تعليق الحبيبات في 300 ميكرولتر من 1× مخزن مؤقت للربط بكثافة حوالي 1 × 10⁶ خلايا / مل. تمت إضافة الملحق V-APC (5 ميكرولتر) ، وتم تحضين العينات لمدة 15 دقيقة في درجة حرارة الغرفة في الظلام. مباشرة قبل قياس التدفق الخلوي ، تمت إضافة 5 ميكرولتر من يوديد البروبيديوم إلى 200 ميكرولتر من تعليق الخلية واحتضانها لمدة 5 دقائق في درجة حرارة الغرفة. تم تحليل العينات على مقياس التدفق الخلوي باستخدام القنوات المناسبة (APC و PI) ، وتمت معالجة البيانات باستخدام استراتيجيات البوابات القياسية للتمييز بين الخلايا الحية والخلايا المبرمج المبكر والخلايا المبرمج المتأخرة والخلايا الميتة.
9. التنميط qRT-PCR
تم استخراج إجمالي الحمض النووي الريبي باستخدام طريقة الفينول كلوروفورم ، وتم تحديد التركيز والنقاء بواسطة قياس الطيف الضوئي بالأشعة فوق البنفسجية. بالنسبة للنسخ العكسي ، تم استخدام 1 ميكروغرام من إجمالي الحمض النووي الريبي في تفاعل 20 ميكرولتر مع مزيج رئيسي للنسخ العكسي وفقا لبروتوكول الشركة المصنعة. تم إجراء تفاعل البوليميراز المتسلسل الكمي في تفاعلات 20 ميكرولتر تحتوي على 2 ميكرولتر من (كدنا) ، و 10 ميكرولتر من مزيج SYBR Green الرئيسي ، و 0.4 ميكرومتر من كل برايمر. تم تشغيل ردود الفعل على نظام تفاعل البوليميراز المتسلسل في الوقت الفعلي مع برنامج ركوب الدراجات التالي: 95 درجة مئوية لمدة دقيقة واحدة ، تليها 40 دورة من 95 درجة مئوية لمدة 15 ثانية و 63 درجة مئوية لمدة 25 ثانية ، مع اكتساب التألق في نهاية كل دورة. تم إجراء تحليل منحنى الذوبان من 55 درجة مئوية إلى 95 درجة مئوية للتحقق من خصوصية المنتج. تم تحليل كل عينة في ثلاث نسخ ، وتم تحديد التعبير النسبي باستخدام طريقة 2-ΔΔCt. U6 كان بمثابة الجين المرجعي لقياس الحمض النووي الريبي الصغير ، وتم استخدام β-actin لتطبيع mRNA.
كانت تسلسلات التمهيدي على النحو التالي: U6: إلى الأمام 5'-CTCGCTTCGGCAGCACA-3', عكس 5'-AACGCTTCACGAATGCGT-3'; miR-22: أمامي 5'-GCCTGAAGCTGCCAGTTGA-3'، خلفي 5'-GTGCAGGGTCGAGGT-3'؛ Wnt1: إلى الأمام 5'-CGATGGTGGGGTATTGTGAAC-3', عكس 5'-CCGGATTTGGCGTATCAGAC-3'; β-أكتين: إلى الأمام 5'-AGTGGACGTGGACATCCGCAAAG-3', عكس 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. تمت معالجة بيانات التضخيم باستخدام برنامج النظام. تم الحصول على جميع البادئات من مزود تجاري.
10. وصمة عار غربية
تم استخراج البروتينات من الخلايا أو الأنسجة المزروعة باستخدام مخزن مؤقت للتحلل يحتوي على مثبطات البروتياز ، وتم تحديد تركيزات البروتين بطريقة حمض البيسينشونيك. تم فصل كميات متساوية من البروتين (40 ميكروغرام لكل حارة) بنسبة 10٪ SDS-PAGE تحت جهد ثابت (80 فولت لتكديس هلام و 120 فولت لحل الهلام) ونقلها إلى أغشية ثنائي فلوريد البولي فينيلدين باستخدام نظام نقل رطب عند 100 فولت لمدة 90 دقيقة. تم حظر الأغشية في 5٪ حليب خالي الدسم محضر في محلول ملحي مخزن من تريس مع 0.1٪ توين -20 (TBST) لمدة ساعة واحدة في درجة حرارة الغرفة. تم تخفيف الأجسام المضادة الأولية ضد Wnt1 و β-catenin و β-actin بنسبة 1: 1000 في TBST التي تحتوي على 1٪ حليب خالي الدسم واحتضانها مع الأغشية طوال الليل عند 4 درجات مئوية. بعد الغسيل ثلاث مرات باستخدام TBST (10 دقائق لكل منهما) ، تم تحضين الأغشية بجسم مضاد ثانوي مترافق مع بيروكسيداز الفجل (تخفيف 1: 5000) لمدة ساعة واحدة في درجة حرارة الغرفة. بعد ثلاث غسلات أخرى باستخدام TBST ، تم تصور نطاقات البروتين باستخدام كاشف الكشف عن التلألؤ الكيميائي المحسن ، وتم التقاط الإشارات باستخدام نظام تصوير رقمي. تم قياس شدة النطاق باستخدام برنامج ImageJ.
11. مقايسة لوسيفيراز
تم إنشاء بلازميد مراسل من النوع البري (Wnt1-WT) يحتوي على 3′UTR من Wnt1 مع مواقع ربط miR-22 المتوقعة ومراسل متحور (Wnt1-MUT) مع مواقع ربط معطلة. تم زرع خلايا الورم الأرومي الشبكي البشري في صفيحة 24 بئرا بكثافة 1 × 10⁵ خلايا لكل بئر وتم نقلها بشكل مشترك مع بلازميدات مراسل Wnt1-WT أو Wnt1-MUT جنبا إلى جنب مع miR-22 تقليد أو تحكم سلبي باستخدام كاشف تعداء قائم على الدهون. لكل بئر ، تم استخدام 500 نانوغرام من بلازميد المراسل و 50 نانومتر من miRNA المقلد أو التحكم. بعد 48 ساعة من الحضانة عند 37 درجة مئوية مع 5٪ ثاني أكسيد الكربون2 ، تم تحلل الخلايا في 100 ميكرولتر من المخزن المؤقت للتحلل السلبي. تم قياس أنشطة Firefly و Renilla luciferase بالتتابع باستخدام نظام مقايسة مراسل لوسيفيراز مزدوج وفقا لبروتوكول الشركة المصنعة. تم تطبيع نشاط Firefly luciferase إلى نشاط Renilla luciferase للتحكم في كفاءة تعدي. تم اختبار كل حالة في آبار ثلاثية التكرار وتكررت في ثلاثة تكرارات بيولوجية مستقلة.
12. التحليل الإحصائي
يتم تقديم جميع البيانات على أنها متوسط ± الانحراف المعياري (SD) من ثلاثة مكررات بيولوجية مستقلة على الأقل. أجريت التحليلات الإحصائية باستخدام البرمجيات الإحصائية. تم إجراء المقارنات بين مجموعات متعددة عن طريق تحليل التباين أحادي الاتجاه (ANOVA) متبوعا باختبار Tukey اللاحق. واعتبرت قيمة p البالغة <0.05 ذات دلالة إحصائية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
التأثيرات المضادة للتكاثر والمضادة للغاز للكركمين المعتمدة على الجرعة على خلايا الورم الأرومي الشبكي البشرية ، مصحوبة بإلغاء تنشيط مسار Wnt / β-catenin
تم علاج خلايا RB البشرية بجرعات متفاوتة من الكركمين على مدى فترة 24 ساعة. كشفت النتائج عن انخفاض يعتمد على الجرعة في بقاء الخلايا وغزوها ، إلى جانب زيادة موت الخلايا المبرمج. على وجه التحديد ، مع زيادة تركيز الكركمين من 10 إلى 50 ميكرومتر ، انخفض تكاثر الخلايا تدريجيا في كل من خطوط الخلايا SO-Rb50 و WERI-Rb-1 عند مقارنتها بالخلايا غير المعالجة (
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
يشتهر الكركمين ، وهو مادة البوليفينول المشتق من جذور الكركم الطويلة ، بخصائصه المضادة للالتهابات ، ومضادة للأوعية الدموية ، ومضادة للتكاثر ، ومضادة للأكسدة23،24. بالإضافة إلى ذلك ، له خصائص مضادة للأورام ، لا سيما قدرته على إحداث موت الخلايا المبرمج في الخلايا الخبيثة25. على الرغم من أن الأبحاث السابقة قد أكدت على التأثيرات المثبطة للنمو للكركمين على خلايا RB22،
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
ليس لدى أصحاب البلاغ تضارب في المصالح للإعلان.
شكر وتقدير
المؤسسة الوطنية للعلوم الطبيعية في الصين (82271218) ؛ صندوق علوم مستشفى تيانجين للعيون (المشروع العام ykyb1908).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| طقم تلطيخ مزدوج ANNEXIN V-APC / PI | سولاربيو | كاليفورنيا1020 | تقييم موت الخلايا المبرمج كما في خلايا RB عن طريق قياس التدفق الخلوي |
| طقم فحص CCK-8 | بيوتايم | ج0038 | قياس الامتصاص عند 490 نانومتر لتقييم القدرة على تكاثر الخلية |
| حاضنة ثاني أكسيد الكربون 2< / sub> | إيبندورف | الحفاظ على ظروف الاستزراع المثلى (37&DEG ؛ C ، 5٪ CO2< / sub> ، والرطوبة المشبعة) لانتشار خلايا RB | |
| كركم | سيغما | ج1386 | التحقيق في الآثار المضادة للورم للكركمين على الورم الأرومي الشبكي (RB) |
| الركيزة الكيميائية المضيئة ECL | السير | ج05-07004 | تصور عصابات البروتين في تحليل اللطخة الغربية |
| مصل الأبقار الجنينية (FBS) | فيفا سيل | C04001-500 C04002-500 | ثقافة الخلية |
| قياس التدفق الخلوي | بيكمان كولتر | جاليوس | تحليل معدل موت الخلايا المبرمج كميا |
| برنامج ImageJ | المعاهد الوطنية للصحة | الإصدار 6 | تحليل شريط اللطخة الغربية ، وتقييم مستويات تعبير البروتين |
| المجهر المقلوب | أوليمبوس | CKX53 | مراقبة وعد الخلايا الغازية في 400 مرات ؛ التكبير في مقايسة Transwell |
| ليبوفيكتامين 3000 | إنفيتروجين | L3000015 | تعداء الخلية |
| قارئ الصفيحة الدقيقة | الحراريه | ك 3 | القياس الكمي لمقايسة الممتز المناعي المرتبط بالإنزيم (ELISA) |
| miR-22 يحاكي Lentivirus | Hanheng التكنولوجيا الحيوية | هاس مير -22 | إنشاء خط خلوي معبر بثبات للتجارب على |
| نظام PCR متعدد الإرسال في الوقت الحقيقي | بيو راد | سي إف إكس 384 | إجراء RT-PCR الكمي (qRT-PCR) لتحليل دقيق للتعبير الجيني |
| البنسلين - الستربتومايسين (PS) | أبكين | BMC1030 | يضاف إلى وسائط زراعة الخلايا لمنع التلوث البكتيري |
| طقم استخراج البروتين | سولاربيو | BC3640-50T | عزل البروتين من عينات الخلايا والأنسجة |
| متجه psiCHECK-2 | بروميجا | JR20110328 | قم ببناء بلازميدات مراسل Wnt1-WT (النوع البري) و Wnt1-MUT (المتحولة) للتحقيق في التفاعل بين miR-22 و Wnt1 3'UTR |
| غشاء PVDF | ميرك | ISEQ00010 | نشاف البروتين |
| الأجسام المضادة الثانوية Rabbit IgG | تقنيات إشارات الخلية | 14708 | اكتشاف اللطخة الغربية عن طريق الارتباط بالجسم المضاد الأساسي |
| برنامج SPSS الإحصائي | آي بي إم | SPSS 20.0 | إجراء التحليل الإحصائي على البيانات التجريبية |
| مجموعة SuperMix لتوليف الخيط الأول من SuperScript III | إنفيتروجين | 11752-050 | النسخ العكسي للحمض النووي الريبي إلى (كدنا) لتحليل RT-PCR اللاحق |
| مجموعة SYBR Premix Ex Taq II | TaKaRa Bio | RR820A | لكي يكتشف RT-PCR كميا التعبير عن Wnt1 و & beta ؛ -actin والجينات المستهدفة الأخرى |
| كاشف TRIzol | إنفيتروجين | 12183-555 | استخراج الحمض النووي الريبي من كل من عينات الخلايا والأنسجة |
| مقياس الطيف الضوئي للأشعة فوق البنفسجية | بيكمان | دو 800 | تحديد تركيز ونقاء عينات الحمض النووي الريبي |
| الجسم المضاد Wnt1 | أبكام | أب15251 | تحليل اللطخة الغربية للكشف عن تعبير بروتين Wnt1 |
| &beta ؛ - الأجسام المضادة للأكتين | أبكام | أب8227 | تستخدم كمرجع داخلي لتطبيع تحميل البروتين في تحليل اللطخة الغربية |
| β-catenin الأجسام المضادة | تقنيات إشارات الخلية | 37447 | تحليل اللطخة الغربية للكشف عن تعبير بروتين بيتا - كاتينين |
المراجع
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.