تقدم هذه الورقة بروتوكولا لتربية خلايا مستقبلات الشم في العث، مما يمكن من البقاء والتمايز على المدى الطويل. يقدم هذا النهج بديلا للتسجيلات الميدانية الصعبة للغاية باستخدام التفكك الإنزيمي والميكانيكي مع تقنية زراعة الأعمدة المعلقة، مما يمكن من دراسات وظيفية مثل تسجيلات الرقعة بالمثبت.
مقالة منهجية
الثقافات الأولية لخلايا مستقبلات الشم في العث
في هذه المقالة
ملخص
الملخص
تعتمد الحشرات بشكل حاسم على شمها في العديد من السلوكيات المتعلقة بالتزاوج والتغذية والتفاعلات الاجتماعية. لقد تطورت خلايا عصبية مستقبلية شمية شديدة الحساسية (ORNs). على الرغم من أن التسجيلات خارج الخلية في الموقع تستخدم عادة لتحليل ملف الاستجابة، وخصائص الترميز، وفسيولوجيا هذه الخلايا، إلا أن التحليل التفصيلي لمسارات نقل الإشارة الخاصة بها يتطلب تسجيلات بتقنية الرقعة. لتسهيل استخدام هذه التقنية الكهربائية الفيزيولوجية والتحكم الجيد في تركيب محاليل الشبكات العصبية العصبية داخل وخارج الخلية، تصف هذه الورقة بروتوكولا لتربية الشبكات العصبية الحشراتية. نظرا لأن الخلايا الخلفية الحشرية (ORNs) محاطة بخلايا مساعدة، مما يمنع أي انفصال حاد للحشرات البالغة والوصول المباشر إلى أغشيتها، يصف هذا البروتوكول تشريح خلايا الهوائيات من عذارى العثة، قبل تمايز العصيانات. يتم تفكك الهوائيات النامية إنزيميا وميكانيكيا ثم ترعى مقلوبة باستخدام 'تقنية العمود المعلق' في وسط مكيف يدعم تمييز وبقاء ال ORNs لعدة أسابيع. ال ORNs التي تزرع بهذه الطريقة مناسبة للاختبارات الوظيفية مثل تسجيلات الرقعة المثبتة.
المقدمة
تعتمد الحشرات بشكل كبير على الشم للتنقل في بيئتها، وتحديد مصادر الغذاء، وتحديد الأزواج، وتجنب المفترسات1،2. نظام الشم لديهم فعال للغاية ومضبوط بدقة، مما يتيح اكتشاف مجموعة واسعة من الإشارات الكيميائية المتطايرة ذات حساسية وخصوصية عالية3. يتم اكتشاف الروائح بشكل أساسي بواسطة الخلايا العصبية المستقبلية الشمية (ORNs)، التي تحتزن في حساسيات تقع على قرون الاستشعار، وهي الأعضاء الشمية الرئيسية، وكذلك على الحساسات الفكية، والتي تعمل كهياكل شمية ثانوية في الديبتيرا مثل البعوض وذبابة الفاكهة4.
لدراسة الآليات الجزيئية الكامنة وراء نقل الإشارات الشمية، من الضروري الوصول المباشر للكهرباء الفيزيولوجية إلى الشبكات العصبية الفردية. التسجيل بالقطع الكهربائية، وهو تقنية معيارية في علم وظائف الأعصاب، يسمح بتوصيف وظيفي مفصل لقنوات الأيونات والمستقبلات ومسارات الإشارات. يمكن تسجيل الرقعة المقبضة في الموقع من الخلايا العصبية الحشرية لكنه يشكل تحديا تقنيا بسبب صغر حجمها، وكثافة التعبئة داخل الخلايا المساعدة، وتغليف الجلد لهذه الخلايا العصبية. تم التغلب على هذه الصعوبات من خلال ترقيع التغصنات الخارجية البارزة من فراشة الساتورنيد العملاقة Antheraea polyphemus5 أو ترقيع ال ORNs من تحضير شبه سليم أو بقطع هوائيات في ذبابة الفاكهة 6,7. على الرغم من أن التسجيلات الميدانية تتيح تسجيل الخلايا العصبية المتمايزة بشكل طبيعي، إلا أن هذه الأساليب تطرح صعوبات تقنية كبيرة، مما يؤكد الحاجة إلى طرق بديلة توفر ظروفا تجريبية أكثر سهولة في الوصول.
تصف هذه المقالة بروتوكولا قويا لزراعة الشبكات المحيطة من هوائيات العث. يبدو أن البروتوكول قابل للتطبيق على مجموعة واسعة من حرشفيات الأجنحة، رغم أنه لم يختبر بعد على مجموعات حشرات أخرى. تمكن هذه الطريقة من الحفاظ على ونمو الريشات العصبية الطبيعية في المختبر، مما يوفر وصولا مباشرا إلى هذه الخلايا لدراسات الرقعة المثبتة 8,9,10 بالإضافة إلى الدراسات الدوائية والتصويرية. يوفر هذا النظام منصة قيمة للتحليل الوظيفي لمسارات النقل الشمي والمكونات الجزيئية المعنية، متجاوزا العديد من القيود المرتبطة بالتسجيلات الميدانية.
البروتوكول
لا يطلب الدراسات التي تشمل الحشرات الموافقة الأخلاقية وبيانات الامتثال على الموافقة على الأخلاقيات. تم وصف المزارع الأولية لحشرات ORN على فراشة صقر التبغ Manduca sexta (حرشفيات الأجنحة، Sphingidae)11، ونحلة العسل Apis mellifera12، وعشة الكرنب Mamestra brassicae (حرشفيات الأجنحة، Noctuidae)13. تظهر البروتوكولات الموصوفة بعض التشابه (التشريح من مرحلة العذراء) والاختلافات (وسط الزراعة، سطح النمو). تم استخدام البروتوكول الموضح هنا بنجاح دون تعديل لتربية الأنواع العصبية من عدة أنواع من العث، مثل M. brassicae، Spodoptera littoralis، Bombyx mori، وAgrotis ipsilon. جميع الخطوات التي تجرى تحت غطاء التدفق الطبقي (الأقسام من 2 إلى 8 يجب أن تتم بشكل غير مقطعي).
1. الحشرات
- يرقات S . littoralis الخلفية (حرشفيات الأجنحة: Noctuidae) على نظام غذائي صناعي وتحافظ عليها عند 22-24 درجة مئوية، ورطوبة نسبية 60-70٪، وتحت دورة ضوء-ظلام 16:8 ساعة كما وصفسابقا 14.
- يفصل الذكور والإناث في مرحلة العذراء. بعد الخروج، يجب إبقاء الذكور البالغين منفصلين عن الإناث في صناديق بلاستيكية ومنحهم وصولا مجانيا إلى محلول السكروز بنسبة 20٪.
- اجمع العذارى الجديدة يوميا وحافظ عليها عند 22 درجة مئوية. في هذه الظروف، تستمر عملية العذراء من 14 إلى 16 يوما. قم بإجراء تجارب مع الذكور أو الإناث.
2. تحضير وسيط ثقافة النعمة المشروطة
ملاحظة: وسط غريس المستخدم لزراعة ال ORNs للعث مشروط على خط خلية ماندوكا سيكستا (MRRL-CH115؛ هذا الخط متوفر عند الطلب). زراعة خلايا MRRL-CH1 كل 3 أسابيع (حوالي 80٪ تداخل) عند 20 درجة مئوية تحت الهواء العادي. لا تسمح للخلايا بتجاوز 90٪ من التقاطع، لأن ذلك يؤدي إلى انفصال الخلايا وزيادة مستويات موت الخلايا. في كل مقطع، قم بتنفيذ الخطوات التالية.
- افصل الخلايا الملتصقة بلطف من السطح السفلي لقارورة واحدة باستخدام ماصنة بحجم 10 مل.
- وزع 1.5 مل من تعليق الخلية في 4 قوارير وأضف 6.2 مل من وسط غريس مع 10٪ مصل بقري جنيني (FBS) في كل قارورة.
- بعد يومين من مرور الزنزانة، إذا لم يكن هناك تلوث في آخر قوارير محضرة، اجمع وسط الزراعة من القوارير الثلاثة المتبقية في المقطع السابق. قم بتصفية (0.2 ميكرومتر) وتخزين وسط غريس المكيف عند 5 درجات مئوية. استخدم هذا لمدة تصل إلى 6 أشهر.
3. تحضير البابين
ملاحظة: يجب تخزين الباباين في أليكوات مركزة (100 مل عند 10 ملغ/مل) وعند -80 درجة مئوية لتقليل فقدان النشاط الإنزيمي مع مرور الوقت. لذلك، يجب تحضير كميات منفصلة من مذيبات البابان. يضاف الإيثيلين ديامين تيترا أسيتيك حمض (EDTA) وL-سيستين إلى البابين النشط16. عند خلطها مع البابين، يكون تركيزها النهائي 0.5 ملليمولار EDTA، و1 ملليمول سيستين، و1 ملغ/ملليتر من البابين (~10 يو/مل).
- أليكوتات بابان: بابين مخفف (25 ملغ) في محلول الملح المتوازن المعقم (HBSS) المعقم (HBSS) مع 20٪ جليسرول. احتفظ به في 100 ميكرولتر على درجة حرارة -80 درجة مئوية.
- مزيجات باباين تجمع: بيبيتي 27 مل من المانيتول وضبط ضغطه الأسموزي إلى 380 ميلاموسمول/لتر باستخدام المانيتول. أضف 5.6 ملغ من EDTA و5.3 ملغ من L-Cystein. اضبط الرقم الهيدروجيني إلى 6.7. التعقيم باستخدام فلاتر منخفضة الارتباط بحجم 0.2 ميكرومتر. احتفظ به في 900 ميكرولتر أليكوات عند -20 درجة مئوية.
4. إعداد وسائل الإعلام الثقافية
ملاحظة: جميع وسائل الإعلام عقيمة. تجرى عمليات التعقيم باستخدام مرشحات معقمة بحجم 0.2 ميكرومتر.
- 3+2 متوسط:
- أضف 3 أجزاء من وسط ليبوفيتز (16.4 مل)، وجزئين من وسط غريس (11 مل)، و2٪ من البنسلين-ستريبتوميسين (0.6 مل) في أنبوب 30 مل. اضبط الضغط الأسموزي إلى 370 ميلاموسمول/لتر (حوالي 150 ملغ من المانيتول) ودرجة الحموضة إلى 6.7 (NaOH 1 M).
- من النتيجة 28 مل من وسط 3+2، قم بترشيح ونقل 5 مل إلى أنبوب بسعة 7 مل. أضف بعض بلورات الفينيل ثيوريا (حوالي 1-2 ملغ) إلى ال 23 مل المتبقية من وسط 3+2 ثم تعقيم ونقل 1.5 مل إلى أنبوب بسعة 7 مل (أنبوب #1) وإلى 6 أطباق بتيري استخدمت لاحقا لتشريح العذراء والتي يشار إليها أدناه باسم 'أطباق التشريح'.
ملاحظة: فينيل ثيوريا يثبط نشاط الأوكسيداز 17,18,19 الذي يؤدي إلى تسود أنسجة الهوائيات.
- متوسط 3+2 مكيف:
- أضف 67 ملغ من المانيتول إلى أنبوب بسعة 30 مل و9 ملليتر من وسط ليبوفيتز والفلتر (0.2 ميكرومتر). ثم أضف جزئين من وسط غريس المكيف.
- اضبط كمية المانيتول وفقا للضغط الأسموزي لوسط لايبوفيتز وغريس بحيث يكون الضغط الأسموزي للوسط المعدل 3+2 370 ± 15 ميلاومول/لتر (الأنبوب #2).
- متوسط HBSS: أضف 12 مل من HBSS و0.25 مل من البنسلين-ستربتومايسين. قم بضبط الضغط الأسموزي إلى 370 mOsmol/L (حوالي 216 ملغ من المانيتول)، ودرجة الحموضة إلى 6.7 (HCl 1 M)، وتعقيم (أنبوب #3).
- وسط HBSS-EGTA: أضف 2 ملغ من الإيثيلين جليكول-بيس (β-أمينوإيثيل إيثر)-N,N,N′,N′-حمض رباعي الأسيتيك (EGTA) و2 مل من محلول HBSS المحضر مسبقا إلى أنبوب 7 مل. اضبط الرقم الهيدروجيني إلى 6.7 (NaOH 1 M) وقم بتعقيم (أنبوب #4).
5. تشريح العذارى (الشكل 1)
ملاحظة: نظف الملقط بشكل دوري باستخدام 70٪ إيثانول وورق ماص ثم اشتعلها بسرعة. التشريح على خلفية سوداء يسهل تصور الهوائي.
- اشطف العذارى التي تبلغ من العمر 2.5 إلى 3 أيام تحت ماء الصنبور ثم تحت ماء مقطر.
- أدخل 20-25 عذراء في طبق بتري تحت غطاء التدفق الطبقي.
- تحت غطاء المحرك، نيران لهبان. املأ أحدهما بنسبة 70٪ إيثانول والآخر بماء مقطر معقم (معقم القامة).
- خذ 4 عذراء مع الملقط واغمسها لمدة حوالي 10 ثوان في إيثانول 70٪ ثم في ماء مقطر معقم وانقلها إلى غطاء طبق بتري.
- اقطع الجلد حول كل هوائي باستخدام ملقط مشتعل وانقل زوج الهوائيات إلى طبق تشريح مملوء بوسط 3+2 (الشكل 1A,B).
- في وسط 3+2، أزل جميع الأنسجة التي تغطي الأنابيب حيث يحدث تطور الهوائيات بحيث يبقى فقط الهوائي وقشرة العذراء (الشكل 1C)، ثم نقل الهوائيات (الشكل 1D) إلى طبق جديد مملوء بوسط 3+2.
ملاحظة: الشكل 1E-J يوضح صور عملية التشريح. - افتح الأنبوب حيث يتطور الهوائي باستخدام ملقط دقيق وأزل الهوائي بلطف. إزالة كل هوائي في قطعة واحدة تجعل عمليات الشطف التالية (الخطوات 7.1-7.9) أسهل، لأنها أكثر عرضة للغوص في قاع الأنبوب.
- باستخدام ماصة باستور معقمة، استنشق بعض الوسط من الطبق ثم أعيده إلى الطبق لترطيب السطح الداخلي للماصة. يساعد ذلك في تقليل ميل الهوائيات للالتصاق بالزجاج داخل الماصة. ثم نقل الهوائيات المفصولة مع الماصة إلى أنبوب 7 مل مملوء بأنبوب 3+2 (أنبوب #1) بسعة 1.5 مل (أنبوب #1).
- كرر الخطوات 5.4 - 5.8 ل 20 عذراء واجمع 20 زوجا من القرون الاستشعارية في الأنبوب #1.
6. تحضير أطباق بتري
ملاحظة: يتم زراعة خلايا الهوائيات باستخدام تقنية العمود المعلق20. وهذا يتطلب تحضير أطباق بتري. يمكن القيام بذلك مسبقا.
- قطع قطع من الزجاج (6-7 مم × 6-7 مم) من شريحة كهربائية. احتفظ بها في الإيثانول.
- تحت الغطاء، قم بإشعال قطع الزجاج، ثم غمسها فورا في هلام البترول المعقم (مثل الفازلين)، ووضعها في أطباق بتري كما هو موضح في الشكل 2A.
7. تفكك الخلايا وطبقها
ملاحظة: بالنسبة لاستبدال الوسائط الموضح أدناه، من المهم إزالة أكبر قدر ممكن من الوسط باستخدام ماصة باستور معقمة، دون التخلص من أي نسيج هوائي. يساعد ذراع مصدر الضوء البارد في رؤية القرون العائمة في الوسط بوضوح أكبر. يتم التفكك الإنزيمي والتفكك الميكانيكي بشكل متسلسل وليس في نفس الوقت لتجنب طرد خلايا الهوائيات لإزالة البابين.
- ضع أليكوت باباين ومذيب باباين أليكوت في درجة حرارة الغرفة.
- استبدل الوسط 3+2 في الأنبوب #1 بالهوائي المفكك ب 1 مل من HBSS (من أنبوب #3) وانتظر 10 دقائق.
- استبدل الوسيط HBSS ب 1 مل من HBSS-EGTA (من الأنبوب #4) وانتظر لمدة 5 دقائق.
- استبدل HBSS-EGTA المتوسط ب 1 مل من HBSS وانتظر 5 دقائق.
- استبدل المتوسط HBSS ب 1 مل من HBSS وانتظر 5 دقائق.
- انقل مذيب البابين (900 ميكرولتر) إلى البابين أليكوت (100 ميكرولتر). اضبط درجة الحموضة لتخفيف البابين الناتج (0.2-0.5 ميكرولتر HCl 1M) إذا لم يكن لونه نفس اللون الأصفر لمحلول 3+2. لا تقيس الرقم الهيدروجيني لأن ذلك قد يلوث المحلول.
- استبدل وسط HBSS ب 1 مل من محلول الباباين المخفف حديثا وحضن لمدة 10-15 دقيقة. قم بالهضم الإنزيمي في درجة حرارة الغرفة.
- استبدل محلول الباباين ب 1 مل من HBSS + 50 ميكرولتر من FBS وانتظر 5 دقائق لتعطيل نشاط البابين.
- اشطف مرتين ب 1 مل من HBSS لمدة 5 دقائق.
- استبدل متوسط HBSS بسعة 1 مل من 3+2 متوسط.
- قم بتلميع طرف ماصة باستور باستخدام موقد بنسن لتقليل قطر فتحتها إلى 50-100 ميكرومتر (يمكن تقييمه بالعين مع الممارسة الكافية).
- قم بفصل الخلايا الهوائية ميكانيكيا عن طريق التوصيل بلطف ذهابا وإيابا على الوسط باستخدام ماصة باستور المصقولة بالنار حتى لا يظهر أي تجمع خلوي. يجب أن يبدو الوسيط ضبابيا.
- أضف 2 مل من وسط 3+2 وأعد تعليق الخلايا في الوسط باستخدام ماصة باستور لضمان كثافة خلوية متجانسة.
- قسم تعليق الخلية إلى 20 صحن بتري (حوالي 150 ميكرولتر لكل طبق) (الشكل 2B).
- دع الخلايا تستقر لمدة 45 دقيقة.
- استبدل الوسط 3+2 في كل طبق ب 150 ميكرولتر من الوسط المكيف 3+2 مع 5٪ FBS.
- أضف غطاء (الشكل 2C) وأغلق الصحون باستخدام Parafilm.
- قم بقلب الأطباق (الشكل 2D) واحتفظ بها بين طبقتين رطبتين من الأنسجة الماصة عند 20 درجة مئوية في الحاضنة.
8. تغيير الوسيط الثقافي
ملاحظة: استبدل نصف وسط الزراعة كل 4-7 أيام.
- افحص الصحون بحثا عن أي تلوث محتمل. عادة ما يؤدي ذلك إلى تغيير اللون (من الأصفر إلى الأحمر المائل).
- افتح الصحون وأزل الأغطية برفق. باستخدام ميكروبيبت P100، أزل 75 ميكرولتر من الوسط واستبدله ب 85 ميكرولتر من وسط 3+2 مكيف طازج مع 5٪ FBS.
- أعد الأغطية، وأغلق الصحون باستخدام فيلم Parafilm، واحتفظ بها كما كانت بين طبقات رطبة من الأنسجة الماصة عند 20 درجة مئوية في الحاضنة.
النتائج
يسمح هذا البروتوكول بالحفاظ على الزراعة الطبيعية للحشرات حية في الزراعة لمدة 3-5 أسابيع. يمكن التعرف على العصبات العصبية العصبية بسهولة من خلال شكلها، الذي يتميز بجسم خلوي صغير دائري أو على شكل لوز، وعمليات رقيقة (عصبيات)، والتي تظهر بوضوح بعد يوم واحد فقط في الزراعة (الشكل 3A) وتستمر في الامتداد لعدة أيام (الشكل 3B-D). يمكن تمييز مجموعتين من الخلايا العصبية بناء على حجم السوما: 5-7 ميكرومتر لغالبية العظميات، و10-12 ميكرومتر للأقلية (الشكل 3D). على الأرجح، الخلايا العصبية الصغيرة هي RNs، بينما الخلايا العصبية الكبيرة هي خلايا حسية ميكانيكية. الخلايا العصبية إما أحادية القطب أو ثنائية القطب وتحدث بشكل منفرد، أو في مجموعات صغيرة، أو داخل نباتات هوائيات غير مفككة. تم تأكيد الهوية العصبية لهذه الخلايا من خلال الكيمياء المناعية مع الأجسام المضادة المضادة لHRP13 (الشكل 4)، وهي أداة قياسية ذهبية لوضع علامات على الخلايا العصبية في علم الأعصاب الحشرية21. بعد أسبوعين، تشكل الخلايا غير العصبية، ومن المرجح أنها خلايا دبقية، طبقة مستمرة على سطح الطبق تنمو عليها الخلايا العصبية وتمدد أعصابها (الشكل 5A,B).
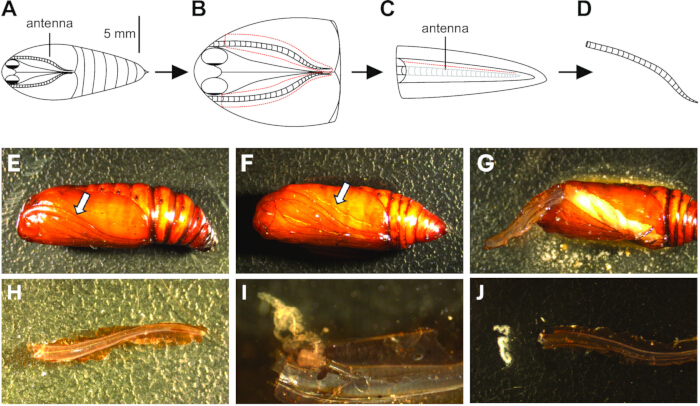
الشكل 1: تشريح العذارى. (أ) الجانب البطني للعذراء. (ب) يتم قطع الجلد حول القرنين (خط أحمر متقطع)، مع الحرص على عدم اختراق العذراء بعمق شديد واختراق الأنسجة البالغة النامية. يتم إزالة كل هوائي بلطف ونقله إلى طبق مملوء بوسط 3+2. (ج) تزال جميع الأنسجة غير الهوائية التي بقيت ملتصقة بقشرة العذراء، وينقل الهوائي إلى طبق جديد بوسط نظيف 3+2. الغشاء الشفاف الذي يغطي الهوائي المتطور يقطع بعناية (خط أحمر متقطع). (د) يزال الهوائي بلطف. (ه) صورة تظهر ما يعادل A. السهم الأبيض يشير إلى الهوائي. (F) صورة تظهر ما يعادل B. يشير السهم الأبيض إلى الشق الذي حدث في الجلد الجلدي. (G) يرفع الهوائي بلطف (H) ثم يزال من هناك. (I) بعد تقسيم الغشاء الذي يتطور فيه، يدفع الهوائي من نهايته البعيدة نحو قاعدته (J) ثم يزيل. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
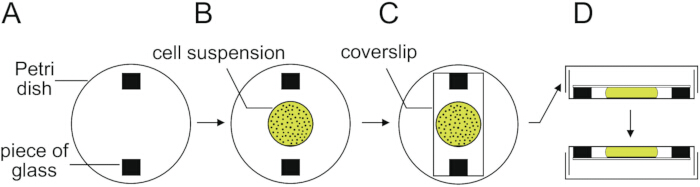
الشكل 2: تقنية العمود المعلق المستخدمة لزراعة خلايا الهوائيات. (أ) قطعتان من الزجاج تلصقان بالفازلين المعقم في قاع أطباق 35 مم. (ب) يتم طلاء تعليق الخلية بلطف في مركز الطبق ويسمح له بالالتصاق بالطبق لمدة 45 دقيقة. (ج) بعد تغيير وسط الزراعة، يتم وضع غطاء معقم بعناية على قطع الزجاج، يغطي ويحافظ على تعليق الخلية في مكانه. (د) يتم إغلاق طبق بتري أخيرا بغطاءه وإغلاقه بشريط من بارافيلم. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
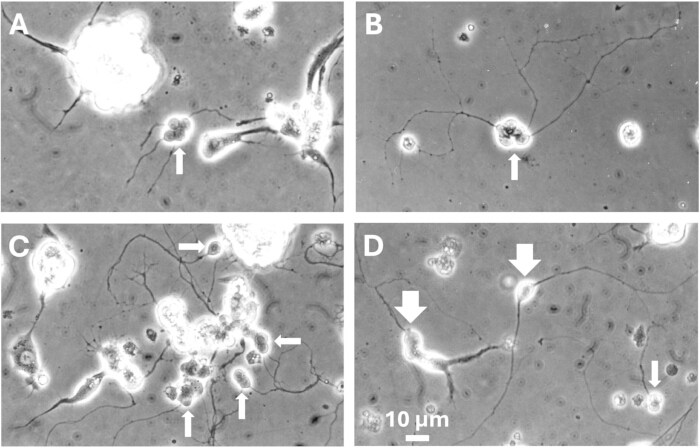
الشكل 3: مناظر للثقافات الشابة من قرون M. brassicae. (أ) بعد يوم واحد، تبدأ الأعصاب في التمدد. (ب) بعد يومين، تظهر الأعصاب أكثر تمددا. (C,D) بعد 5 أيام، تصبح شبكة العصابات أكثر كثافة. يمكن تمييز ال ORNs (الأسهم البيضاء) بسهولة من خلال شكلها. توجد إما بمفردها أو في مجموعات صغيرة. تجمعات الخلايا الكبيرة، مثل تلك المرئية في (C)، على الأرجح هي نباتات هوائيات غير مفككة. يمكن أن تحتوي على الخلايا العصبية، كما يتضح من الأعصاب العصبية التي تخرج منها. تشير الخلايا العصبية الصغيرة إلى الأسهم الصغيرة (A-D) وتظهر خلايا عصبيين كبيرتين بأسهم كبيرة (D). المقياس (10 ميكرومتر) هو نفسه في A إلى D. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
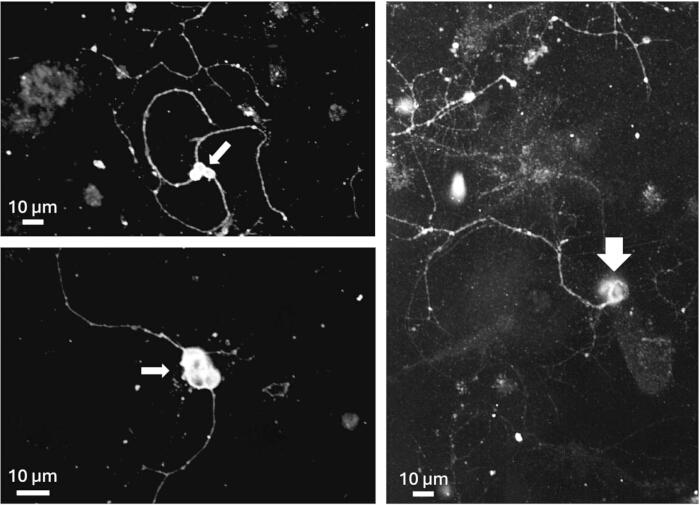
الشكل 4: تلوين مضاد لفيروس نقص الفائدة على الخلايا العصبية الصغيرة (سهم صغير) وكبيرة (سهم كبير). أجريت التجربة على زراعات عمرها 5 أيام. شريط المقياس: 10 ميكرومتر. للبروتوكول التفصيلي، انظر13. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
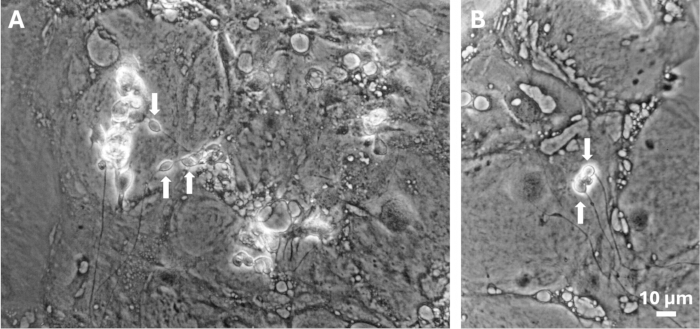
الشكل 5: مشاهد للثقافات القديمة من قرون الاستشعار العصبية (A,B) بعد أسبوعين من الزراعة، يغطي سطح الطبق طبقة كثيفة من الخلايا غير العصبية. الأسهم البيضاء تشير إلى ال ORNs. المقياس (10 ميكرومتر) هو نفسه في A و B. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
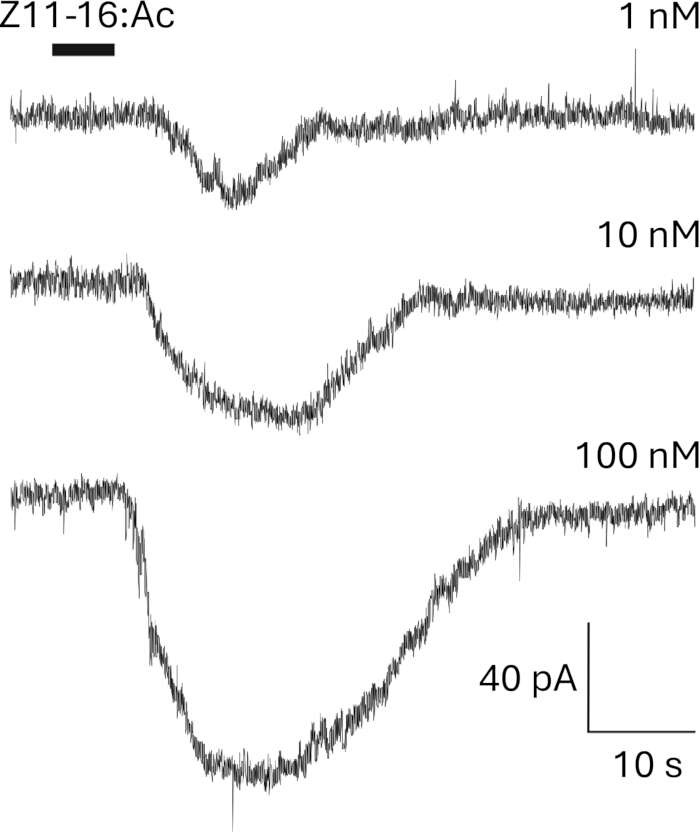
الشكل 6: الخلايا العصبية في الثقافة لمدة لا تقل عن أسبوعين تستجيب لمحفزات الروائح. يمكن تسجيل الاستجابات ل Z11-16:Ac، المركب الرئيسي للفيرومونات في M. brassicae، في التكوين الخلوي الكامل لتقنية المشبك الرقعة. تم إذابة Z11-16:AC في ثنائي ميثيل كبريتسيد (DMSO) مع تركيز نهائي لا يتجاوز 0.1٪. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
الخطوات الرئيسية للبروتوكول هي كما يلي: (1) تشريح العذارى في المرحلة التطورية الصحيحة. عندما تكون العذراء صغيرة جدا، يكون هناك القليل جدا من نسيج القرون الاستشعارية، ويكون من الصعب جدا جمعها لأنها فضفاضة وتتفرق بسرعة كبيرة. عندما تكون الشرنقة كبيرة في السن، تصبح تشريح الهوائيات أسهل بكثير، لكن العصفورات العصبية لا تبقى في المختبر. في الأنواع الثلاثة المختلفة التي أعدنا منها الزراعة الأولية لسرطانات ORN، أثبتنا تجريبيا أن المرحلة المثلى لتشريح العذارى هي نصف يوم فقط، بين 2.5-3 أيام حيث يتم الحفاظ على العذارى عند 20 درجة مئوية. (ii) مزج وسط Grace ووسط L-15 الخاص بليبوفيتز. يستخدم وسط غريس عادة لدعم نمو خلايا الحشرات، بينما يدعم وسط L-15 من ليبوفيتز نمو الخلايا العصبية. (3) إزالة FBS عند طلاء الخلايا. إذا كان هناك حاجة إلى مكمل الوسط ب FBS، يجب أن يكون الوسط المستخدم لزراعة أطباق بتري مع تعليق الخلية خاليا من FBS، لأن وجوده يعيق ارتباط الخلايا وبالتالي يثبط بقاء الآن. (4) زراعة خلايا الهوائيات بكثافة عالية. وهذا أمر حاسم لبقاء الأطباء الاحتياطيين. (5) استخدام تقنية العمود المعلق. يعزز نمو الخلايا بشكل أفضل ويطيل عمر الزراعة بشكل كبير.
مشكلة محتملة في استكشاف الأخطاء في البروتوكول هي أن وقت الحضانة مع الباباني (10-15 دقيقة) يجب تعديله وفقا لدفعة الباباين والوقت الذي مضى منذ تحضير أليكوات 100 ميكرولتر من البابان، حيث يفقد الباباني نشاطه تدريجيا حتى عند تخزينه عند -80 درجة مئوية. نظرا لأن مظهر القرون لا يتغير بشكل ملحوظ أثناء حضانة البابان، لا يمكن تقييم وقت الحضانة بالفحص البصري.
السؤال الأساسي يتعلق بالتمييز بين الأطباء الطبيعيين في المختبر. مع البروتوكول المذكور، يمكن لمرضى ORN البقاء على قيد الحياة لمدة 3-5 أسابيع. وبالنظر إلى أن قرون الاستشعار تجمع قبل حوالي 10 أيام من ظهور البالغين، وأن الهوائيات تصبح تعمل بالكامل قبل يوم إلى يومين من الظهور — كما يقاس بسجلات EAG وسجلات الحس الفردي (ملاحظة شخصية) — فإن فترة البقاء هذه نظريا توفر وقتا كافيا لتمايزها في المختبر. وجد أن ORNs تعبر عن تنوع كبير في قنوات الأيونات 8,9,10,14,22,23,24,25,26. يستجيبون للمحفزات الشمية بطريقة تعتمد على الجرعة (الشكل 6)، مما يشير إلى أنهم يتبعون على الأقل جزئيا مسار التمايز الطبيعي في المختبر.
تغلف الخلايا النسبية الحشرية ثلاث خلايا مساعدة27 تحدد الحجرة الحسية وتتحكم في التركيب الأيوني والبروتيني لللمف الحسي الذي تغمر فيه شجريات ORN. تقوم هذه الخلايا المساعدة، بشكل خاص، بتخليق بروتينات الارتباط الشمي (OBPs). في دراسة سابقة، لاحظنا تعبيرا عاليا عن OBP في الزراعة التي عمرها 3-4 أسابيع، مما يشير إلى أن الخلايا المساعدة تتمايز أيضا في المختبر13. من قيود الثقافة أن التغصن في النورونات المزروعة ليس في اللمفاوي الحسي، وهو وسط بتركيز K+ أعلى وتركيز Na+ أقل من الهيموليمف28,29، مما يخلق جهدا عبر الظهارة بين هذين القسمين30. وعلى العكس، توفر زراعة الخلايا الوصول إلى الخلايا المساعدة لتوصيف الفيزيولوجيا الكهربائية، وهو نهج لم يتبع من قبل، حسب علمنا.
ومن المثير للاهتمام أن الاختبارات الأولية التي أجريت على S. littoralis تشير إلى أن البروتوكول مناسب أيضا لزراعة خلايا خرطوم العث. لوحظت خلايا عصبية ذات شكل مشابه، والتي من المرجح أنها خلايا عصبية مستقبلة شهية، وإن كانت بأعداد قليلة.
توفر الزراعة الأولية سهولة الوصول إلى ممرات الرياح الحشرية لتسجيل الرقعة باستخدام المشابك. العيب الرئيسي مزدوج: يجب زراعة الخلايا بكثافة عالية، مما يعني أن العديد من الهوائيات يجب تشريحها؛ هذه هي الثقافات الأساسية، مما يعني أنه يجب إعداد ثقافات جديدة بانتظام. ومع ذلك، فالأمر يستحق ذلك، لأنه رغم صغر حجمها، فإن ترقيع هذه الخلايا العصبية سهل نسبيا، بشرط أن تكون الزراعة ذات جودة جيدة.
الإفصاحات
المؤلفون ليس لديهم ما يكشفون عنه.
شكر وتقدير
يرغب المؤلفون في شكر مونيكا ستينغل على هدية خط الخلية MRRL-CH1.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| حقن 10 مل | أفانتور | لا يوجد | |
| محاقن 2.5 مل | أفانتور | لا يوجد | |
| 21 مم × 26 مم أغطية الغطاء | أفانتور | WVR - 631-1335 | |
| شرائح زجاجية بمقاس 76 مم × 26 مم | أفانتور | WVR - 631-9460 | السماكة: 1 مم وأكثر؛ 0.05 مم |
| Acrodisc Supor PF، 0.8/0.2 & mu; m، 25 مم | أفانتور | WVR - 514-4102 | مرشحات الحقنة منخفضة الارتباط |
| الأوتوكلاف | لا يوجد علامة تجارية محددة | لا يوجد | |
| موقد بنسن | لا يوجد علامة تجارية محددة | لا يوجد | يجب أن يكون قابلا للتشغيل بواسطة دواسة |
| كورنينغ أطباق زراعة الأنسجة Falcon Easy-Grip بحجم 35 مم × 10 مم. كورنينغ 353001 | أفانتور | WVR - 734-0005 | أطباق بترى معقمة لزراعة الخلايا |
| دي-مانيتول | سيغما-ألدريتش | M9546 | خزن في درجة حرارة الغرفة |
| دومونت #5 ملقط | لا يوجد | ||
| EGTA | سيغما-ألدريتش | E4378 | خزن في درجة حرارة الغرفة |
| فالكون: 50 مل، 25 سم&> وزيادة السطح؛ ختم السدادة، نسيج | أفانتور | WVR - 734-0009 | قوارير زراعة الخلايا |
| مصل الأبقار الجنيني | ثيرموفيشر ساينتفيك | A3160801 | المتجر عند -20 ودرجة مئوية؛ C |
| وسط Grace's Insect مدعوم باللاكتلومين هيدروليزات والخميرة (1x)-Gibco | ثيرموفيشر ساينتفيك | 11605045 | وسيط الحشرات من غريس مكمل. المتجر عند الساعة 5 ودرجة الصباح؛ C |
| HBSS بدون كالسيوم ومغنيسيوم-جيبكو | ثيرموفيشر ساينتفيك | 14170138 | محلول الملح المتوازن لهانكس (HBSS). المتجر عند الساعة 5 ودرجة الصباح؛ C |
| بيبتي مصل ملفوفة فرديا، فالكون | أفانتور | WVR - 734-0352 | ماصات معقمة ذات استخدام واحد بسعة 10 مل |
| بيبتي مصل ملفوفة فرديا، فالكون | أفانتور | WVR - 734-0343 | ماصات معقمة قابلة للتخلص من 25 مل |
| L15 متوسط - Gibco | ثيرموفيشر ساينتفيك | 11415056 | محرك ليبوفيتز L-15 المتوسط. المتجر عند الساعة 5 ودرجة الصباح؛ C |
| غطاء زراعة الأنسجة اللامينية | لا يوجد علامة تجارية محددة | لا يوجد | |
| N-فينيل ثيوريا | سيغما-ألدريتش | P7629 | خزن في درجة حرارة الغرفة |
| باباني | سيغما-ألدريتش | P5306 | مسحوق ليوفيلي، معقم معقما. المتجر يحصل على سعرات عند -80 & درجة؛ C |
| بارافيلم | سيغما-ألدريتش | P7793 | |
| Pasteur pipettes plugged مع قطن الصوف - 150 مم | لا يوجد علامة تجارية محددة | ليتم تعقيم المحرك كما هو (باستخدام سدادة قطنية) وتخزينه في صندوق تعقيم تحت غطاء المحرك | |
| البنسلين-ستربتوميسين | سيغما-ألدريتش | P4333 | البنسلين-ستريبتومايسين: 5000 وحدة UI/ml + 5000 وميكرو؛ g/ml. المتجر عند -20&20 درجة؛ أليكوت معقمة C في 1 مل |
| مقياس الرقم الهيدروجيني | لا يوجد علامة تجارية محددة | ||
| متحكم البيبيت | أفانتور | WVR - 612-7179 | بديل رخيص هو استخدام الماصة اليدوية وحدات التحكم (مثل مضخة البيبيت أو مضخات بيل-آرت بيبيت) |
| الحاضنة المبردة | PHC أوروبا | الطراز MIR-154-PE | نظام ضبط تركيز ثاني أكسيد الكربون<>2 هو غير ضروري لتنظيم الرقم الهيدروجيني لوسائط تربية الحشرات |
| المجهر المجسم | لا يوجد علامة تجارية محددة | تكبير من 10 إلى 64x مزود ب مصدر ضوء بارد وأدلة ضوء مرنة | |
| أطباق بترى المعقمة لتشريح العذراء | أفانتور | WVR - 391-0868 | يمكن استخدام أي طبق معقم |
| حاويات التعقيم مع غطاء لولبي، 30 مل | أفانتور | WVR - 215-0321 | أنابيب معقمة بسعة 30 مل |
| حاويات التعقيم مع غطاء لولبي، 7 مل | أفانتور | WVR - 215-0328 | أنابيب معقمة بحجم 7 مل |
| الفازلين | سيغما-ألدريتش | تخزين معقم في درجة حرارة الغرفة؛ هلام البترول |
المراجع
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).