يصف هذا البروتوكول استخدام نظام غشاء دهني مستوٍ مصغر من نوع Montal–Mueller مع تضخيم متكامل لإجراء تسجيلات مستقرة للقنوات الأيونية المفردة. وقد تم توضيح هذه الطريقة من خلال إعادة تشكيل قناة K2P اصطناعية منقاة للتحقق من أداء النظام.
مقالة منهجية
الفيزيولوجيا الكهربائية أحادية القناة باستخدام نظام مونتال-مولر المصغر لطبقة الدهون الثنائية المستوية لتسجيل قناة K2P اصطناعية
في هذه المقالة
ملخص
الملخص
يوفر إعادة التشكيل الوظيفي للقنوات الأيونية في طبقات ليبيدية ثنائية مستوية استراتيجية لاستقصاء نشاط القنوات على مستوى الجزيء الواحد. ومع ذلك، فإن أنظمة طبقات Montal–Mueller التقليدية تتطلب عادةً تجهيزات تجريبية ضخمة، وتجميعاً يدوياً للغرفة، وأحجام تسجيل كبيرة نسبيًا، مما يزيد من استهلاك الكواشف وقد يؤدي إلى ظهور مصادر إضافية للضوضاء الكهربائية بسبب الأسلاك الممتدة ومراحل الرأس الخارجية. نقدم هنا منصة طبقات ثنائية مصغرة وجاهزة للاستخدام (BLMchipMM) مدمجة مع مضخم مدمج يتيح تسجيلات مستقرة للقناة الواحدة مع تقليل استهلاك الكواشف وتبسيط التشغيل. يصف هذا البروتوكول استخدام هذا النظام لإجراء قياسات الفيزيولوجيا الكهربائية للقناة الواحدة. وباستخدام هذا النظام، قمنا بإعادة تشكيل قناة K2P اصطناعية (ancTREK1) واستخدمناها كبروتين اختبار لإثبات المبدأ للتحقق من عملية إعادة التشكيل وتسجيل القناة الواحدة. وتظهر تسجيلات القناة الواحدة علاقة بين التيار والجهد في محاليل K+ متماثلة خالية من Mg2+، مع قيم توصيل متوافقة مع تلك المسجلة لقنوات TREK1. ويثبت نجاح إعادة تشكيل هذه القناة الشبيهة بـ K2P فائدة هذا النظام لتحليل القناة الواحدة في الأغشية الاصطناعية.
المقدمة
تعد عملية إعادة تكوين القنوات الأيونية في أغشية الطبقة الدهنية الاصطناعية، والمعروفة أيضاً باسم أغشية الدهون السوداء (BLMs)، إحدى التقنيات المعتمدة لإجراء التوصيف الفيزيولوجي الكهربائي للقنوات الأيونية على مستوى الجزيء الواحد1. وتنشأ مزايا أغشية BLMs من بنيتها؛ حيث يتم إنشاء طبقة دهنية مستوية (PLB) داخل ثقب في سطح غير قطبي، مما يفصل بين محلولين سائلين. وبذلك، ومن خلال محاكاة الغشاء البيولوجي، تتيح هذه التقنية تسجيل نشاط القنوات الأيونية تحت ظروف محكومة للغاية، بما في ذلك تركيب الدهون الغشائية وتركيزات الإلكتروليتات أو المركبات الكيميائية، مع بقائها متاحة من كلا الجانبين. كما تسمح هذه الإتاحة بإدراج القنوات الأيونية مباشرة، على سبيل المثال من محلول ميسيلار أو عن طريق الاندماج المدفوع بالليبوسومات2,3.
كان أول نظام غشاء اصطناعي يتم وصفه قد أُنشئ باستخدام تقنية الطلاء4، حيث يتم وضع قطرة من الدهون المذابة في مذيب عضوي غير متطاير على فتحة صغيرة باستخدام فرشاة طلاء. وتؤدي إضافة محلول مائي إلى كلا جانبي الفتحة بعد ذلك إلى التكوين التلقائي لطبقة ثنائية من الدهون. ومع ذلك، فإن العيب الرئيسي في هذه الطريقة هو بقاء آثار من المذيب، والتي قد تؤثر على خصائص الغشاء. ولتقليل كمية المذيب العضوي المتبقي داخل الطبقات الثنائية الدهنية، تم تطوير طريقة الطي5، مما أتاح تكوين أغشية ثنائية الطبقة (BLMs) "خالية من المذيبات". وفي هذا النهج، يتم نشر محلول دهني في مذيب متطاير على سطح الماء لتكوين طبقتين أحاديتين، ومن خلال رفع مستوى الطور المائي تدريجياً فوق الفتحة، تنطوي هذه الطبقات الدهنية الأحادية فوق الفتحة لتشكل طبقة ثنائية. ومع ذلك، ورغم تعريف غشاء الـ BLM الناتج بأنه خالي من المذيبات، فإن التكوين الناجح للطبقة الثنائية يتطلب معالجة مسبقة للفتحة بطبقة رقيقة من مذيب غير متطاير. ويتكون العنصر الأساسي المطلوب لهذه التجارب من غرفة تسجيل تحتوي على حجرتين مائيتين (يُشار إليهما عادةً باسم cis و trans) يفصل بينهما حاجز محب للدهون يحتوي على فتحة صغيرة (بقطر 50–250 µm) (الشكل 1). يتم إدخال أقطاب الفضة/كلوريد الفضة (Ag/AgCl) في كل حجرة. وعند غمرها في محلول الإلكتروليت، تُنشئ هذه الأقطاب الاتصال الكهروكيميائي بين الطبقة الثنائية الدهنية وجهاز التسجيل. ويتكون الأخير من مضخم تثبيت الجهد (voltage-clamp amplifier)، والذي يسمح بالتحكم الدقيق في الجهد عبر الغشاء والقياس المتزامن للتيارات الأيونية التي تمر عبر البروتينات المكونة للمسام والمدمجة في الغشاء.
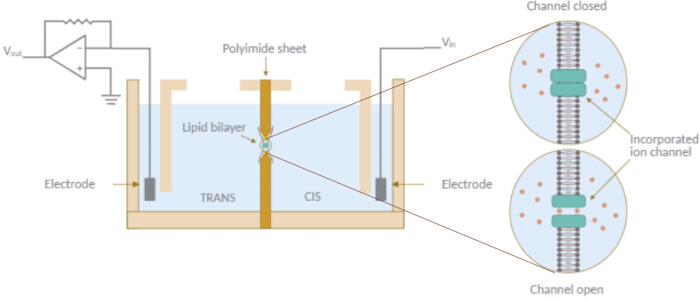
الشكل 1: مخطط لإعدادات الفيزيولوجيا الكهربائية للطبقة الدهنية الثنائية المستوية (PLB). مخطط للمكونات الأساسية المطلوبة لتجارب PLB. تتكون غرفة التسجيل من حجرتين مائيتين (cis و trans) يفصلهما حاجز محب للدهون يحتوي على فتحة حيث تتشكل الطبقة الدهنية الثنائية. تُغمر أقطاب الفضة/كلوريد الفضة (Ag/AgCl) في محلول الإلكتروليت في كل حجرة. يقوم أحد الأقطاب بتطبيق محفزات جهد (مثل الموجات الجيبية، أو المربعة، أو المثلثة)، بينما يتصل القطب الآخر، المثبت عند التأريض، بمحول تيار إلى جهد يقوم بتحويل التيار الأيوني إلى إشارة جهد متناسبة. يتم تضخيم الإشارة، وترشيحها اختيارياً، ورقمنتها، وتسجيلها للمراقبة والتحليل في الوقت الفعلي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تم إنشاء طرق أخرى أيضاً لتكوين أغشية ليبيدية ثنائية الطبقة (BLMs). ومن بين هذه الطرق، يتمثل أحد النهج الشائعة في إنشاء طبقات ليبيدية ثنائية معلقة على طرف ماصة تثبيت الجهد (patch-clamp pipette). وبناءً على ذلك، تسمح طريقة "الغمس الطرفي" (tip-dip method)6 بتكوين طبقة ليبيدية ثنائية معلقة خالية من المذيبات على فتحة ماصة زجاجية دقيقة بقطر يبلغ ~4 µm عن طريق غمس الطرف بشكل متكرر عبر طبقة ليبيدية أحادية عند الواجهة الفاصلة بين الهواء والماء، مما يؤدي إلى التقاط ورقة واحدة خلال كل عملية غمس. كما استُخدمت تقنية تثبيت الجهد (patch-clamp) لقياسات القناة الواحدة في الأغشية الليبيدية ثنائية الطبقة. فعلى سبيل المثال، في طريقة "الثقب" (punch-out method)7، تُستخدم ماصة زجاجية يتراوح قطرها بين 10 و 80 µm لتثبيت غشاء كبير كان قد طُلي في الأصل فوق فتحة في غرفة التسجيل. وبدلاً من ذلك، تتضمن طريقة "رقعة الليبوزوم" (liposome-patch method) استخدام حويصلة مسبقة التكوين يتراوح حجمها من النانو إلى الميكرو كغشاء ليبيدي ثنائي الطبقة (BLM) خالٍ من المذيبات8,9. وبشكل خاص، استُخدمت الحويصلات أحادية الطبقة العملاقة على نطاق واسع لتسجيلات القناة الواحدة من خلال تكوينات مختلفة لتثبيت الجهد، بما في ذلك وضعيات الرقعة الملتصقة بالخلية والرقعة المستأصلة10,11.
ظهرت أيضاً عدة منصات لتكوين طبقات ثنائية متعددة بشكل متوازٍ ومؤتمت. أحد هذه النهج هو تقنية الطبقة الثنائية للواجهة القطيرية (DIB)12، والتي يتم فيها وضع قطيرات مائية في خليط من الدهون والمذيب. في هذه الطريقة، تتجمع الطبقات الدهنية الأحادية تلقائياً حول القطيرات، ويحدث تكوين الطبقة الثنائية عندما يتلامس قطيران. وفي بعض الإعدادات، يمكن تكوين الـ DIBs على هيدروجيلات لتحسين استقرار الغشاء13. وهناك نهج بديل يعتمد على تكوين DIB عند طرف ماصة زجاجية وهو طريقة الطبقة الثنائية لفقاعة التلامس (CBB)14، حيث يتم إدخال فقاعات مائية في طور زيتي باستخدام ماصتين دقيقتين. وكما هو الحال في نهج DIB، تتشكل طبقة دهنية ثنائية تلقائياً عندما يتم جعل فقاعتين مغطاتين بالدهون في حالة تلامس. وتتمثل منصة أخرى في أنظمة BLM المصفوفة، والتي تتكون من مصفوفات من مسام محددة بدقة تتراوح أحجامها من المقياس الميكروني إلى المقياس النانوي ومرتبة في نمط شبكي. وفي هذه الأنظمة، يمكن تكوين طبقات دهنية ثنائية معلقة إما يدوياً — باستخدام تقنيات الطلاء أو الطي، أو عبر تمزيق حويصلات الليبوزوم15,16,17 — أو تلقائياً عن طريق الحقن المتسلسل للمحاليل الدهنية والمحاليل المنظمة عند ربطها بهياكل القنوات مائعية الدقيقة18,19.
على الرغم من تطوير العديد من الطرق لتشكيل أغشية ثنائية الطبقة (BLMs) خالية من المذيبات، فإننا نركز في هذا العمل على طريقة الطي المنفذة ضمن منصة مصغرة ومتكاملة لدراسة سلوك القناة الواحدة لبروتينات الغشاء المدمجة في طبقة دهنية اصطناعية ثنائية. أُجريت التجارب باستخدام إعداد Elements، الذي يتكون من مكونين: قارئ Elements Nanopore (مضخم eNPR) وBLMchipMM (الشكل 2A والشكل 2B). المكون الأول عبارة عن مضخم تثبيت جهد مدمج ومنخفض الضجيج يبسط مساحة العمل من خلال تشكيل وحدة كاملة ومستقلة، مما يلغي الحاجة إلى أجهزة خارجية إضافية. أما BLMchipMM فهو نظام مجمع مسبقاً ومصغر مصمم لتقنية Montal–Mueller ويعمل كواجهة تجريبية. ويتكون من غرفة تسجيل شفافة من مادة بولي ميثيل ميثاكريلات (PMMA) مدمجة مع لوحة دارات مطبوعة (PCB)، والتي تتضمن مقبسين مصممين لاستيعاب أسلاك Ag/AgCl التي تعمل كأقطاب كهربائية للاتصال المباشر بالمضخم. يتكون الهيكل الأساسي للغرفة من حاجز من البولي إيميد مختوم بين مكونين شفافين من PMMA. يبلغ سمك الحاجز 50 µm، باستثناء منطقة مركزية صغيرة (3.78 mm2)، حيث ينخفض السمك إلى 25 µm لتسهيل تشكيل الطبقة الثنائية. وفي مركز هذه المنطقة الأقل سمكاً، تم إنشاء فتحة مستدقة عن طريق الحفر بالليزر، مما يعزز الاستقرار الميكانيكي للطبقة الدهنية الثنائية20,21. تتوفر أربعة أقطار للفتحة (50 و75 و100 و140 µm)، مما يسمح بضبط سعة الغشاء (الجدول 1). يتميز كل مكون من PMMA بتجويف على شكل حرف C بحجم 110 µL، مما يشكل حجرتين سائلتين على جانبي حاجز البولي إيميد لاحتواء المحلول الإلكتروليتي. كما تم حفر قناتين سائلتين مائلتين في كل كتلة PMMA على جوانب متقابلة: تُستخدم إحدى القنوات لإدخال قطب Ag/AgCl، بينما تسمح الأخرى بالضبط اليدوي لمستوى المحلول المنظم داخل الخزان عن طريق الماصة.
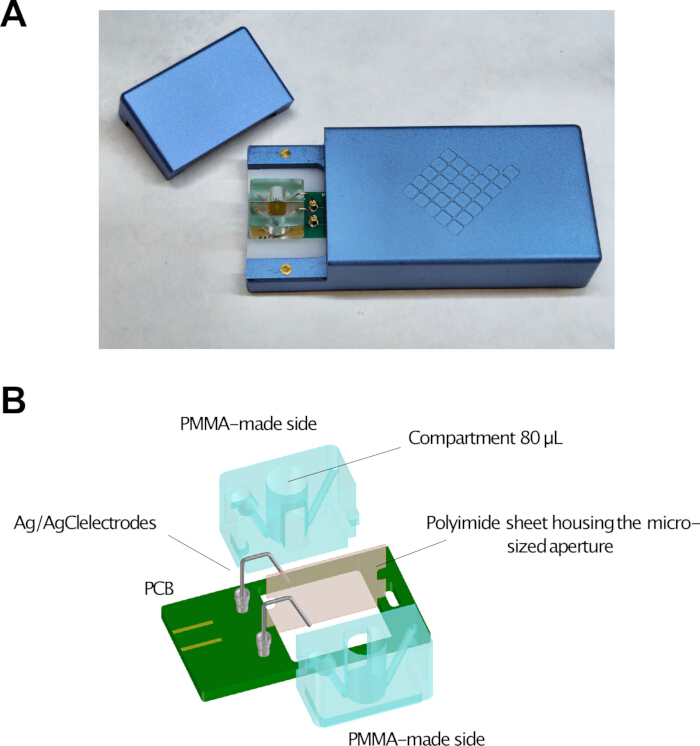
الشكل 2: نظام Elements Nanopore Reader و BLMchipMM المدمج. (أ) صورة فوتوغرافية تظهر BLMchipMM مُدخلًا في الفتحة المخصصة لمضخم Elements Nanopore Reader (eNPR). (ب) تمثيل تخطيطي لمكونات BLMchipMM، بما في ذلك حجرة التسجيل المصنوعة من بولي ميثيل ميثاكريلات (PMMA)، والحاجز البولي إميدي الذي يحتوي على الفتحة الميكروية، ولوحة الدائرة المطبوعة (PCB) التي تحتوي على مقابس لأقطاب Ag/AgCl وفتحة لمحاذاة الحجرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| قطر الثقب (µm) | 50 | 75 | 100 | 140 |
| سُمك الثقب (µm) | 25 | 25 | 25 | 25 |
| السعة الغشائية النموذجية (بيكو فاراد) | 20–40 | 40–60 | 60–90 | 90–140 |
الجدول 1: خصائص تنسيقات فتحات BLMchipMM المتاحة. قطر الثقب، وسُمك الحاجز عند منطقة الفتحة، وقيم سعة الغشاء النموذجية لأجهزة BLMchipMM بفتحات قياس 50، و75، و100، و140 µm. تظهر قيم سعة الغشاء للطبقات الثنائية المكونة من ليبيدات 1,2-diphytanoyl-sn-glycero-3-phosphocholine.
عادةً ما تكون غرف التسجيل المستخدمة في المختبرات إما وحدات مُصنعة محلياً أو أجهزة متاحة تجارياً. وفي الحالة الأولى، يتطلب بناء النظام تجميع مكونات متنوعة وتطوير طريقة موثوقة لإنشاء الفتحة في السداد، وهو ما قد يحد من إمكانية توفرها في العديد من المختبرات. وحتى عند استخدام الأجهزة التجارية، فإنها غالباً ما تتطلب دمجاً يدوياً لمكونات متعددة قبل كل تجربة. وفي المقابل، فإن جهاز BLMchipMM يأتي مُجمعاً مسبقاً ولا يتطلب التفكيك بين التجارب لإجراء عمليات التنظيف الروتينية. ويمكن غسل الوحدة نفسها وإعادة استخدامها في تجارب متعددة دون المساس بجودة تكوين الغشاء، شريطة أن تكون المذيبات المستخدمة متوافقة مع مواد الجهاز. وهذا يقلل من التباين المعتمد على المستخدم ويحد من مخاطر التسرب المرتبطة بعناصر الختم اليدوية. كما أن استخدام أقطاب أسلاك الفضة الخارجية القابلة للاستبدال والتجديد يطيل العمر التشغيلي للنظام، خاصة في ظل الظروف التجريبية التي تسرع من استهلاك الأقطاب.
علاوة على ذلك، غالبًا ما تتميز الأجهزة المصنعة يدويًا بأحجام حجرات كبيرة، مما يزيد من كمية المكونات البيولوجية والكيميائية المطلوبة للتجارب. وفي المقابل، يتيح تصغير حجم BLMchipMM تقليل الأحجام التجريبية إلى الحد الأدنى، مما يؤدي إلى خفض استهلاك الكواشف والبروتينات والمركبات الأخرى بشكل كبير. وهذا أمر مفيد بشكل خاص عند العمل مع بروتينات الغشاء التي يصعب التعبير عنها أو ذات المردود المنخفض، أو عندما تؤدي التكلفة العالية لتخليق المركبات المختبرة إلى زيادة التكلفة الإجمالية للتجارب. والأهم من ذلك، أن BLMchipMM يتيح تكوين طبقات ثنائية ذات كمية مذيبات محدودة ويدعم تكوينات الغشاء غير المتماثلة، حيث يمكن أن تتكون كل ورقة من أنواع مختلفة من الدهون5,22، مما يسهل دراسة وظيفة بروتين الغشاء تحت ظروف محكومة.
تُجرى قياسات التيار تقليديًا باستخدام مضخمات مصممة لتجارب تثبيت الرقعة (patch-clamp)، والتي تتطلب غالبًا الاتصال بجهاز تحويل رقمي منفصل للحصول على البيانات والتحكم عبر واجهات رسومية. ولا تقتصر مشكلة هذه الأنظمة على كونها ضخمة وباهظة الثمن فحسب، بل إنها تشتمل تكرارًا على إجراءات إعداد غير بديهية للمستخدمين غير الخبراء. بالإضافة إلى ذلك، ونظرًا لحجم غرفة التسجيل وتصميم المضخمات القياسية — التي تفتقر عادةً إلى تدريع مدمج لحماية مدخل مرحلة الرأس من التداخل الكهروستاتيكي — غالبًا ما يكون استخدام قفص فاراداي خارجي ضروريًا. ويمكن أن تؤثر جودة هذا القفص وتأريضه بشكل كبير على أداء الضوضاء في النظام. ويقوم جهاز BLMchipMM، عند استخدامه مع مضخم متكامل مدمج، بتبسيط هذا التكوين من خلال تقليل الحاجة إلى المكونات الخارجية؛ حيث تتم عملية تحويل الإشارة رقميًا داخل الجهاز، ويوفر غلاف النظام تدريعًا يقلل من القابلية للتأثر بالتداخل الكهرومغناطيسي المحيط.
لإثبات مدى قابلية تطبيق هذه المنصة، استُخدمت القناة الشبيهة بـ K2P والمسمّاة ancTREK1، وهي عضو سلفي من العائلة الفرعية TREK تم اشتقاقه حسابياً (الشكل التكميلي 1)، كبروتين اختبار للتحقق من نجاح عملية إعادة التشكيل وتسجيل القناة المنفردة. تشكل قنوات K2P قنوات تسريب بوتاسيوم ثنائية القسيمات تنظم جهد الغشاء الراكن والاستثارة الخلوية، وتمثل قنوات TREK عائلة فرعية جيدة التوصيف.
البروتوكول
لم تتضمن هذه الدراسة مشاركين بشريين، أو مواد مشتقة من البشر، أو حيوانات تجارب. وبناءً على ذلك، لم يكن الحصول على موافقة أخلاقية مطلوباً وفقاً للإرشادات المؤسسية والوطنية.
1. تجهيز إعدادات الفيزيولوجيا الكهربائية
- معايرة الجهاز
على الرغم من أن المعايرة الرسمية ليست مطلوبة لأن النظام مهيأ مسبقاً من المصنع، إلا أنه يجب التحقق من الوظائف الصحيحة للنظام قبل تكوين الغشاء.- قياس مقاومة الدخل في ظروف الدائرة المفتوحة (أي بدون إدخال BLMchipMM). يجب أن تكون المقاومة المقاسة ≥1 TΩ، مما يؤكد سلامة دخل المضخم.
- التحقق من استجابة النظام باستخدام خلية نموذجية تحتوي على مقاومة 1 GΩ. يجب أن تكون المقاومة المقاسة 1 GΩ ضمن نطاق ±30%، وهو ما يتوافق مع تفاوت المقاومة المدمجة.
- قياس ضوضاء الخط الأساسي في ظروف الدائرة المفتوحة عند جهد ثابت (0 mV). يجب أن تكون ضوضاء RMS ≤300 fA عند معدل أخذ عينات 10 kHz وعرض نطاق ترددي 5 kHz، مما يؤكد أداء النظام منخفض الضوضاء.
- تحضير أقطاب Ag/AgCl
- عند الاستخدام الأول، تُشطف الأسلاك الفضية بالإيثانول والماء المقطر مرتين.
- بالنسبة للأسلاك المستخدمة مسبقاً، يُستخدم ورق صنفرة ناعم جداً لإزالة طبقة Ag/AgCl القديمة من سطح السلك حتى يظهر السطح فضياً لامعاً بشكل موحد مع بريق معدني نظيف وخالٍ من أي بقايا مرئية. ثم تُشطف بالإيثانول والماء المقطر مرتين.
- كلورة الجزء الطرفي من الأسلاك الفضية عن طريق غمرها في محلول هيبوكلوريت الصوديوم (NaOCl) بنسبة 1%–5% (الشكل 3A) حتى تصبح رمادية فاتحة، وعادة ما يستغرق ذلك 15–30 دقيقة. يجب مراقبة الأسلاك المكلورة بمرور الوقت لرصد أي تدهور أثناء الاستخدام، والذي يظهر على شكل تغير في اللون، أو انزياح في تيار الخط الأساسي، أو كليهما.
ملحوظة: يمكن إجراء الكلورة باستخدام مبيض منزلي شائع (1%–5% NaOCl).
تنبيه: لا تقم بكلورة الأسلاك على طولها بالكامل. اترك الجزء الطرفي الذي يركب في مقبس PCB بدون كلورة لضمان التوصيل الكهربائي السليم.
تنبيه: تم تصميم المقابس الموجودة على PCB للأسلاك الفضية بقطر 0.5 mm. قد لا تتناسب الأقطار الأخرى بشكل صحيح أو قد تؤدي إلى توصيلات غير مستقرة.
- تجميع BLMchipMM
- أدخل الجزء الطرفي غير المكلور من السلكين الفضيين في مقابس PCB. استخدم الملاقط إذا لزم الأمر لوضعهما بشكل صحيح (الشكل 3B).
- ضع النهايات المكلورة للأسلاك في القنوات السائلية المحفورة في مكون PMMA (الشكل 3C).
- قم بتدوير BLMchipMM برفق وثبته على PCB عن طريق تركيب السن السفلي لغرفة تسجيل PMMA في الفتحة المخصصة (الشكل 3D).
- تحقق من موضع الأسلاك وتأكد من وصولها إلى نهاية القنوات السائلية. إذا لزم الأمر، ادفع الأسلاك برفق حتى تظهر النهايات في قاع الحجيرات (الشكل 3E).
تنبيه: ضع الأسلاك في أقرب وضع ممكن من مكون PMMA. فقد يتسبب الانحناء المفرط في ملامسة غطاء المضخم، مما يؤدي إلى حدوث دائرة قصيرة وتشبع في الإشارة.
- تحضير الدهون ومحلول التسجيل
- حضّر 100 µL من محلول هيكساديكان بتركيز 1% (v/v) في n-hexane بتركيز 100% لمعالجة فتحة السدادة مسبقاً. يُحفظ هذا المحلول عند −20°C لمدة تصل إلى أسبوع واحد.
- أعد تعليق دهون 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) في n-pentane بتركيز 100% للوصول إلى تركيز نهائي قدره 15 mg/mL. يُحفظ هذا المحلول عند −20°C لمدة تصل إلى 24 ساعة.
- حضّر محلول التسجيل الإلكتروليتي في درجة حرارة الغرفة (RT; 20°C–25°C) عن طريق خلط 3 mL من محلول KCl القياسي بتركيز 1 M مع 150 µL من محلول 4-(2-hydroxyethyl)-1-piperazineethanesulfonic acid القياسي بتركيز 1 M (مع ضبط pH عند 7.4 باستخدام KOH وبواسطة مقياس pH). أضف الماء المقطر مرتين لتصل الحجم النهائي إلى 15 mL. يُحفظ المحلول عند 4°C لمدة تصل إلى أسبوع واحد (الجدول 2).
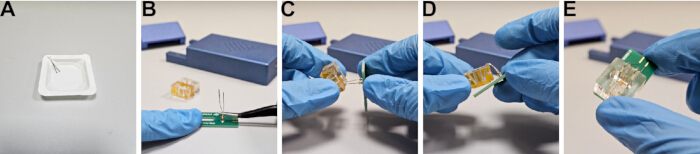
الشكل 3: تجميع جهاز BLMchipMM. (A) كلورة أسلاك Ag عن طريق النقع في المبيض. (B) إدخال أسلاك Ag في مقابس PCB. (C) وضع أسلاك Ag داخل قنوات الموائع الدقيقة. (D) وضع غرفة التسجيل فوق PCB. (E) التحقق من الموضع الصحيح للأقطاب الكهربائية داخل القنوات المائعية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| كاشف | التركيز النهائي | الحجم |
| ماء مقطر مزدوج | — | أضف إلى 15 مل |
| كلوريد البوتاسيوم (KCl) (1 مولار) | ٢٠٠ مليمولار | ٣ مل |
| HEPES بأس هيدروجيني 7.4 (KOH) (1 مولار) | ١٠ ملي مولار | 150 µL |
الجدول 2: محلول تسجيل الإلكتروليت. تكوين محلول الإلكتروليت المستخدم لتسجيلات PLB، بما في ذلك تركيزات الكواشف وأحجام التحضير. يتم ضبط الحجم النهائي إلى 15 mL باستخدام ماء مقطر مزدوج. يجب ترشيح محلول التسجيل باستخدام مرشح حقنة بسعة 0.2 µm قبل الاستخدام.
ملاحظة: قم بترشيح محلول التسجيل باستخدام مرشح حقنة بمسامية 0.2 µm قبل الاستخدام. قد تتوفر ليبيدات DPhPC على شكل مسحوق جاف أو مذابة في الكلوروفورم. تُخزن كلتا الصيغتين في درجة حرارة −20°C في قوارير زجاجية محكمة الإغلاق تحت غاز خامل لمنع الأكسدة. اترك المسحوق الجاف حتى يصل إلى درجة حرارة الغرفة (RT) قبل الفتح. حضّر محاليل جديدة من المسحوق الجاف واستخدمها خلال 24 h. في حال استخدام مخزونات الكلوروفورم، قم بتبخير المذيب تماماً تحت النيتروجين قبل إعادة التعليق، لأن الكلوروفورم المتبقي يمكن أن يزعزع استقرار الغشاء.
2. تكوين PLB باستخدام طريقة Montal–Mueller
تصف الخطوات التالية عملية تكوين غشاء اصطناعي باستخدام طريقة الطي، والتي تُعرف أيضاً بتقنية Montal–Mueller5 (الشكل 4). يتضمن هذا النهج المعالجة المسبقة لفتحة الحاجز بطبقة رقيقة من الهيكساديكان بتركيز 1% (v/v) في n-hexane، وترسيب محلول دهني لتكوين طبقات أحادية عند الواجهة بين الهواء والماء، ثم طي هذه الطبقات الأحادية فوق الفتحة مع رفع مستوى محلول الإلكتروليت تدريجياً في مقصورات الغرفة.
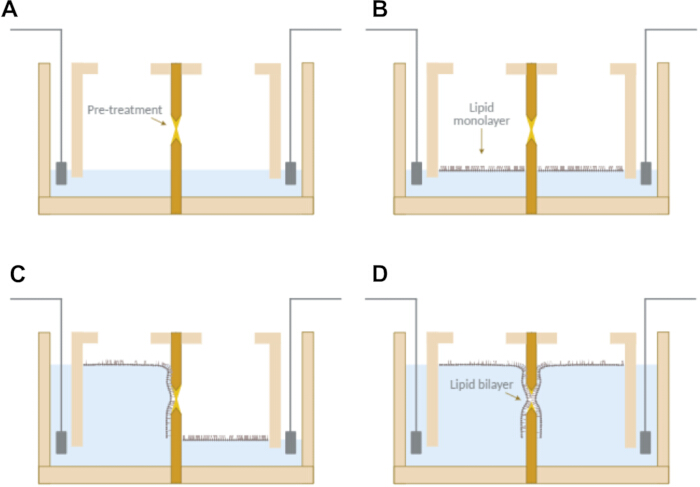
الشكل 4: تكوين الطبقات الدهنية المزدوجة (PLBs) باستخدام طريقة مونتال-مولر. (A) المعالجة المسبقة للفتحة باستخدام 1% هكساديكان في n-hexane وملء الحجرات حتى مستوى الفتحة. (B) تكوين طبقات دهنية أحادية عند الواجهة بين الهواء والماء. (C> و D) الرفع المتسلسل لمستوى المحلول المنظم في كل حجرة، مما يؤدي إلى طي الطبقات الأحادية وتكوين طبقة دهنية مزدوجة خالية من المذيب عبر الفتحة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
- تكوين الغشاء
- عالج فتحة الحاجز مسبقاً بمحلول hexadecane بتركيز 1% (v/v) في n-hexane باستخدام طرف ماصة. ضع حوالي 2 µL لكل جانب (الشكل 4A).
- اترك المذيب ليتبخر لمدة 5 min عند درجة حرارة 23°C–25°C ورطوبة نسبية تتراوح بين 45%–50%.
- أدخل شريحة BLMchipMM المجمعة في المضخم.
- قم بتوصيل المضخم بالكمبيوتر عبر كابل USB وافتح برنامج الحصول على البيانات.
- اضبط نطاق التيار على 2 nA وقم بتنشيط أداة تقدير RC لمراقبة سعة الغشاء ومقاومته.
ملاحظة: إعدادات تقدير RC مهيأة افتراضياً ولكن يمكن تعديلها إذا لزم الأمر. - املأ كل حجرة بـ 30 ± 2 µL من محلول التسجيل حتى الحافة السفلية للفتحة (الشكل 4A).
تنبيه: لا تسمح لمحلول التسجيل ببل المنطقة المحيطة بالفتحة. - وزع 2.5 ± 0.1 µL من محلول الدهون على شكل قطرات فوق سطح الطور المائي في كل حجرة (الشكل 4B).
- اترك المذيب ليتبخر لمدة 2 min.
- ضع طرف ماصة في قاع إحدى الحجرات بزاوية 90° تقريباً وأضف 80 ± 2 µL من محلول التسجيل. كرر العملية للحجرة الثانية (الشكل 4C و الشكل 4D).
ملاحظة: تشير أوقات تبخر المذيب إلى ظروف 23°C–25°C، وهواء ساكن، ورطوبة نسبية تتراوح بين 45%–50%. - أغلق غطاء قفص فاراداي وراقب إشارة التيار. تشير قيم مقاومة الغشاء التي تزيد عن 200 GΩ إلى نجاح تكوين الطبقة الثنائية وسلامة الغشاء.
ملاحظة: يتم الاستدلال على نجاح تكوين الغشاء من خلال إشارة تيار على شكل موجة مربعة تتأرجح حول الصفر، مع سعة تتناسب مع سعة الغشاء (الشكل 5A).
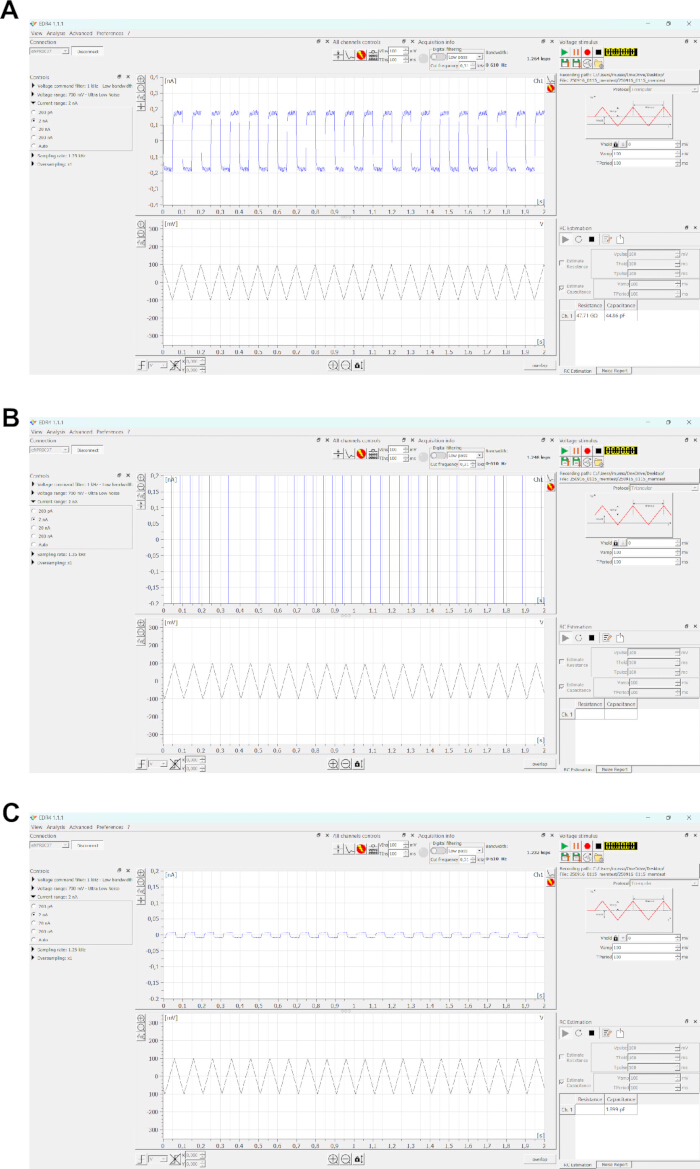
الشكل 5: مراقبة تكوين الغشاء باستخدام واجهة برنامج الحصول على البيانات. (A) أثر ممثل يوضح تكوين الغشاء بنجاح. ينتج شكل موجي جهدي مثلثي (100 mV من القمة إلى القمة، 10 Hz) تياراً سعوياً بموجة مربعة يتناسب مع سعة الغشاء (~45 pF). (B) أثر ممثل يشير إلى عدم تكوين الغشاء، ويتميز بتشبع إشارة التيار. (C) الإشارة السعوية المقابلة للسعة الشاردة عند عدم تكوين الطبقة الثنائية، كما هو الحال عندما تكون الفتحة مكشوفة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
ملاحظة: تشير الإشارة التي تتنقل بين حدود نطاق التيار إلى فشل الغشاء (الشكل 5B).
ملاحظة: تزداد ضوضاء RMS مع زيادة سعة الغشاء وبالتالي مع زيادة حجم الفتحة. وتتراوح قيم الضوضاء النموذجية المقاسة في ظل ظروف جهد ثابت (0 mV)، وبمعدل أخذ عينات 5 kHz ونطاق ترددي 2.5 kHz، كما يلي: 0.48–2.00 pA (50 µm)؛ و 0.74–2.62 pA (75 µm)؛ و 1.00–3.52 pA (100 µm)؛ و 1.59–5.27 pA (140 µm).
ملاحظة: يمكن أن يؤدي خفض ورفع مستوى المحلول المنظم في إحدى الحجرات إلى تعزيز تكوين الغشاء في حال فشل المحاولات الأولية.
ملاحظة: ضع فقاعة هواء فوق الفتحة لمدة ~5 s باستخدام رأس ماصة لتسهيل تكوين الطبقة الثنائية إذا لزم الأمر.
ملاحظة: قد يؤدي خفض مستوى المحلول المنظم إلى ما دون الفتحة أو وجود فقاعة هوائية إلى إنتاج إشارة مقابلة للسعة الشاردة (الشكل 5C). أما إذا كانت المخرجات تشبه الشكل 5B، فقد تكون المعالجة المسبقة غير فعالة؛ لذا يجب إعادة تطبيق محلول المعالجة المسبقة والليبيدات، أو تنظيف الجهاز وتكرار الإجراء.
تنبيه: قم بإجراء تعويض إزاحة الجهد فقط في حالة عدم وجود غشاء. إذا كان الغشاء موجوداً، فقم بتمزيقه باستخدام وظيفة ZAP قبل إجراء التعويض.
ملاحظة: يمكن إجراء التجارب على طاولة مختبر قياسية؛ ومع ذلك، يمكن استخدام طاولة مضادة للاهتزاز إذا لزم الأمر.
3. تنظيف شريحة BLMchipMM
- قم بإزالة غرفة التسجيل من لوحة الدوائر المطبوعة (PCB).
- اغسل كلا المقصورتين والقنوات المائعية باستخدام كحول إيزوبروبيل (IPA) بتركيز 100%.
تحذير: لا تتجاوز مدة التعرض لـ IPA دقيقة واحدة.
تحذير: لا تستخدم الأسيتون أو الإيثانول بتركيز 100%، حيث قد تؤدي هذه المذيبات إلى إتلاف مادة سد الغرفة.
ملاحظة: تحقق من توافق أي مذيبات إضافية مع مادة PMMA قبل الاستخدام. - اشطف الغرفة جيداً بالماء المقطر مرتين.
- جفف غرفة التسجيل تماماً باستخدام تيار خفيف من الهواء المضغوط حتى تختفي جميع قطرات الماء المرئية.
ملاحظة: افحص الغرفة تحت مكبر مضاء للتأكد من عدم وجود أي أغشية زيتية متبقية. إذا لزم الأمر، كرر إجراء التنظيف والتجفيف.
ملاحظة: تأكد من أن الغرفة نظيفة وجافة تماماً قبل بدء تجربة جديدة.
4. تعبير وتنقية قناة الأيونات الاصطناعية (ancTREK1)
- تجهيز بنية التعبير الجيني
تصف الخطوات التالية استراتيجيات الاستنساخ، والتعبير غير المتجانس في خلايا Freestyle-293F، وتنقية بروتين ancTREK1.
إنشاء ناقل التعبير باستخدام تضخيم تفاعل البوليميراز المتسلسل (PCR)، والهضم بإنزيمات القطع، والربط، والتحويل إلى خلايا بكتيريا Escherichia coli كيميائية الكفاءة23,24تعبير تسلسل ancTREK1 (الشكل التكميلي 1باستخدام ناقل ثديي يحتوي على وسم GFP عند الطرف الكربوكسيلي (C-terminal) ووسم His₈، مما يسمح بالكشف القائم على الفلورة25,26 وتنقية ألفة ثنائية الخطوة باستخدام حمض النيكل-نيتريلو تري أسيتيك (Ni2راتنج ⁺-NTA)27,28,29 يتبع ذلك استخدام راتنجات الأجسام النانوية المضادة لبروتين الفلورسنت الأخضر (anti-GFP nanobody resin)30,31,32. - تضخيم DNA الخاص بـ ancTREK1 بواسطة تفاعل البوليميراز المتسلسل (PCR)
- قم بتخفيف بادئات تفاعل البلمرة المتسلسل (PCR primers) وقالب الحمض النووي (DNA template) إلى التركيزات النهائية التالية: 10 µM وحوالي 20 نانوغرام/µL باستخدام ماء مقطر مزدوج ومعقم.
- قم بإذابة جميع الكواشف على الثلج.
- قم بتحضير 50 µL تفاعل PCR يحتوي على 10 µL من محلول منظم بتركيز 5×، 2.5 µL من كل 10 µM بادئ، 2 µL من قالب الحمض النووي الريبوزي منقوص الأكسجين (DNA)، 1 µL من 10 ملي مولار من الديوكسي نيوكليوتيدات ثلاثية الفوسفات (dNTPs)، 0.5 µL من بوليميراز الحمض النووي (DNA polymerase) عالي الدقة، ومياه مقطرة مرتين معقمة لإكمال الحجم (جدول ٣امزج بلطف ثم قم بالطرد المركزي لفترة وجيزة.
- أجرِ تفاعل البوليميراز المتسلسل (PCR) وفقاً للشروط التالية: المسخ الأولي عند 98°C لمدة 3 دقائق؛ 30 دورة من 98°C لمدة ٣٠ ثانية، 68°C لمدة 30 ثانية، و 72°C لمدة 30 ثانية؛ التمديد النهائي عند 72°C لمدة ٣ دقائق (جدول ٤).
- قم بتشغيل ناتج تفاعل البوليميراز المتسلسل (PCR) على هلام أغاروز بتركيز 1% (وزن/حجم) في محلول منظم TAE بتركيز 1× عند 60 فولت لمدة 90 دقيقة، ثم استقطع النطاق الصحيح.
ملاحظة: قم بتنقية نواتج تفاعل البوليميراز المتسلسل (PCR) باستخدام طريقة الاستخلاص من الجل، وقم بقياس تركيز الحمض النووي (DNA) عند طول موجي 260 نانومتر، واحفظ نواتج تفاعل البوليميراز المتسلسل المنقاة عند درجة حرارة −20°C إذا لزم الأمر.
- إجراء الهضم التقييدي
- حضّر تفاعلات الهضم التي تحتوي على 2 µg من ناتج تفاعل البوليميراز المتسلسل (PCR) و 2 µg من الحمض النووي البلازميدي في أنابيب منفصلة. أضف 5 µL من المحلول المنظم بتركيز 10×، 0.5 µL EcoRI و 0.5 µL إنزيمات القطع NotI، والضبط إلى 50 µL بماء مقطر مزدوج (جدول 5).
- امزج بلطف ثم حضّن عند 37°C لمدة 3 ساعات.
- تثبيط الإنزيمات حرارياً عند 65°C لمدة 20 دقيقة.
- أضف 1 µL أضف الفوسفاتاز القلوي (alkaline phosphatase) إلى عملية هضم الناقل (vector digestion) ثم قم بالتحضين عند 37°C لمدة ساعة واحدة.
- قم بتشغيل نواتج الهضم على هلام أغاروز بتركيز 1%، ثم استخلص الحزم المطلوبة.
ملاحظة: قم بتنقية قطع الحمض النووي DNA باستخدام طرق التنقية المناسبة، واحفظ الحمض النووي DNA المُنقى في درجة حرارة −20°C إذا لزم الأمر.
- إجراء الربط والتحول الجيني
- قم بتحضير 20 µL تفاعل الربط الذي يحتوي على الناقل والقطعة المدرجة (بنسبة مولية 3:1)، 2 µL محلول منظم الليغاز بتركيز 10×، و 1 µL إنزيم الليغيز (جدول 6).
- تُحضن في درجة حرارة الغرفة لمدة ساعة واحدة.
- قم بإذابة خلايا بكتيريا E. coli ذات الكفاءة الكيميائية على الثلج.
- أضف 5 µL من خليط الربط إلى 50 µL من الخلايا، ثم تُحضن على الثلج لمدة 20 دقيقة.
- صدمة حرارية عند 42°C لمدة دقيقة واحدة، ثم يُعاد إلى الثلج لمدة دقيقتين.
- إضافة 450 µL وسط LB والتحضين عند 37°C مع الرج لمدة ساعة واحدة.
- يُطرد مركزياً عند 3,000 × g لمدة دقيقة واحدة، ثم يُعاد تعليق الراسب في 50 µL.
- تُزرع العينات على أغار انتقائي وتُحضن طوال الليل عند 37°C.
ملاحظة: تأكد من نجاح عملية الاستنساخ عن طريق التسلسل.
- نقل الجينات إلى خلايا HEK293F
- استزراع خلايا 293F في 250 مل بتركيز 0.5 × 10⁶ خلية/مل في وسط تعليق خالٍ من المصل، ثم تُحضن عند 37°C مع 6% من ثاني أكسيد الكربون (CO₂).
- تجهيز 250 µg من الحمض النووي الريبوزي منقوص الأكسجين (DNA) في حجم نهائي قدره 3 مل من وسط غذائي منخفض المصل.
- تحضير 750 µg من البولي إيثيلين إيمين (PEI) في الماء بتركيز 1 مجم/مل، ثم يتم ضبط الرقم الهيدروجيني ليكون بين 6.9 و7.1 باستخدام هيدروكسيد الصوديوم (NaOH)، ويُرشح المحلول باستخدام مرشح تعقيمي، ثم يُكمل الحجم النهائي إلى 3 مل باستخدام وسط غذائي منخفض المصل.
- اجمع بين محلولي DNA وPEI، وامزجهما بلطف، ثم حضنهما لمدة 10 دقائق في درجة حرارة الغرفة.
- أضف المزيج قطرة تلو الأخرى إلى الخلايا.
- أضف بوتيرات الصوديوم بتركيز نهائي قدره 10 ملي مولار بعد مرور 4 ساعات.
- تُجمع الخلايا بعد 48 ساعة عن طريق الطرد المركزي بسرعة 500 × g لمدة 15 دقيقة.
- تُخزن كتل الخلايا عند درجة حرارة −80°C.
- إذابة بروتينات الغشاء
- قم بإذابة كتل الخلايا المستخلصة من 100 مل من مستنبت HEK293 على الثلج.
- أعد تعليق كتلة الخلايا المترسبة في محلول التحلل بنسبة 1:10 (وزن/حجم) (جدول 7).
أضف المنظف للوصول إلى التركيزات النهائية التالية: 1% من n-dodecyl-β-D-maltoside (DDM) و0.1% من cholesteryl hemisuccinate (CHS). - حضّن مع التدوير عند 4°C لمدة ساعتين.
- يتم الطرد المركزي بسرعة 100,000 × g لمدة ساعة واحدة عند 4°C.
- اجمع السائل الطافي.
تنبيه: قم بتنفيذ جميع الخطوات في 4°C باستخدام محاليل منظمة مبردة مسبقاً.
- إجراء تنقية باستخدام كروماتوغرافيا الألفة للأيونات المعدنية (IMAC)
- حزمة 500 µL من النيكل (Ni)2⁺راتنج -NTA في عمود ترشيح بالجاذبية.
- قم بموازنة الراتنج باستخدام حجمين من حجم العمود (CVs) من محلول الموازنة المنظم (جدول 8).
- قم بتحميل العينة واحضنها مع التقليب اللطيف بسرعة 10 دورات في الدقيقة و 4°C لمدة 3 ساعات.
- ضع العمود بشكل رأسي واجمع السائل النافذ عن طريق التدفق بالجاذبية.
- اغسل الراتنج بـ 10 أحجام عمود (CVs) من محلول الغسل المنظم الذي يحتوي على 30 ميلي مولار من الإيميدازول.
- استخلص البروتين باستخدام 10 أحجام عمود (CVs) من محلول الاستخلاص الذي يحتوي على 300 ملي مولار من الإيميدازول.
ملحوظة: تحليل الكسور باستخدام الفصل الكهربائي للهلام بوجود كبريتات دوديسيل الصوديوم (SDS-PAGE)شكل 6). احفظ كسور التدفق والكسور الغسيلة للتحليل. يُخزن البروتين في 4°C طوال الليل إذا لزم الأمر
- إجراء تنقية مضادة لبروتين GFP
- عبئ 1 مل من راتنج مضاد لـ GFP (anti-GFP resin) في عمود ترشيح بالجاذبية.
- قم بموازنة الراتنج باستخدام حجمين من حجم العمود (2 CVs) من المنظم 1 (الجدول ٩قم بتحميل ناتج شطف كروماتوغرافيا الألفة المعدنية (IMAC eluate) وحضنه مع خلط لطيف بسرعة 10 دورات في الدقيقة و 4°C لمدة ٣ ساعات.
- ضع العمود في وضع رأسي واجمع السائل المتدفق عن طريق التدفق بالجاذبية.
- اغسل الراتنج بالتتابع باستخدام ١٠ أحجام عمود (CVs) من المنظم ١، ثم ١٠ أحجام عمود من المنظم ٢، ثم ١٠ أحجام عمود من المنظم ١.
- قم بتخفيف إنزيم HRV-3C protease في 2 مل من Buffer 1 بنسبة بروتياز إلى بروتين تبلغ 1:50.
- أضف المنظم 1 (Buffer 1) المدعم ببروتياز HRV-3C إلى الراتنج، واخلطه بلطف، ثم حضنه طوال الليل عند 4°C في وضع عمودي ثابت.
- اجمع البروتين المنفصل في جزء الشطف.
- ركّز العينة باستخدام مُركّز طرد مركزي بحد قطع قدره 50 كيلو دالتون عند 3,000 × g و 4°C حتى يصل الحجم النهائي إلى ما يقرب من 500 µL تم الوصول إليه.
ملاحظة: قم بتحليل الكسور باستخدام الفصل الكهربائي للهلام بوجود كبريتات دوديسيل الصوديوم (SDS-PAGE)الشكل 7). أعد تعليق البروتين بشكل دوري أثناء عملية التركيز لمنع التجميع. يُحفظ البروتين المنقى عند درجة حرارة −80°C بعد التجميد السريع. تقريباً 60 µg يمكن الحصول على [كمية] من البروتين من 100 مل من المزرعة.
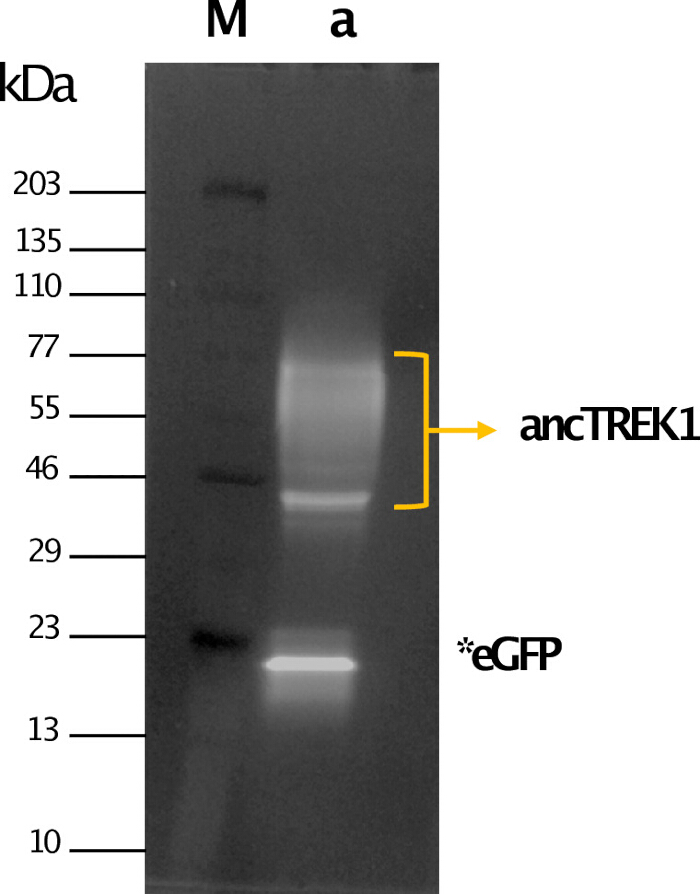
الشكل 6: تنقية ancTREK1 بواسطة كروماتوغرافيا الألفة للأيونات المعدنية المثبتة (IMAC). تحليل الفصل الكهربائي بهلام بولي أكريلاميد دوديسيل كبريتات الصوديوم (SDS-PAGE) لكسور شطف IMAC مع الكشف الفلوري. المسار M: واسم الوزن الجزيئي. المسار a: كسر شطف IMAC يظهر بروتين ancTREK1 المسمى ببروتين الفلورسنت الأخضر (GFP) (السهم الأصفر). يشار إلى GFP الحر الناتج عن الانقسام الذاتي بـ (*eGFP). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
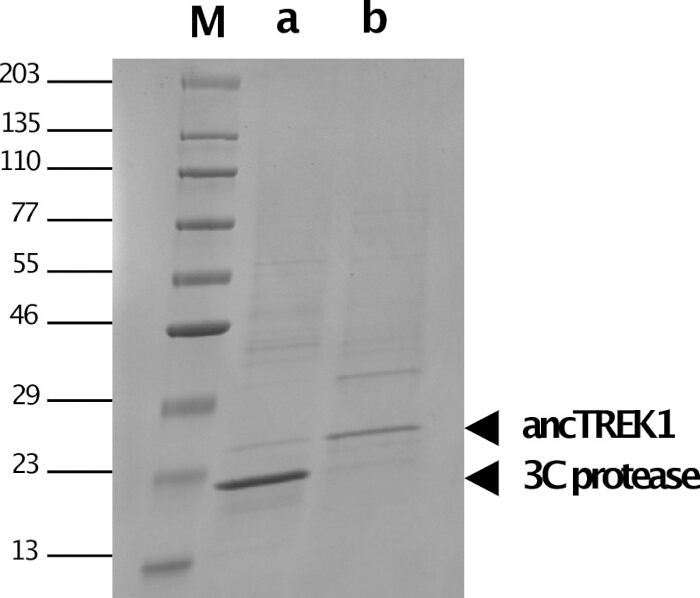
الشكل 7: تنقية ancTREK1 بواسطة كروماتوغرافيا الألفة لـ anti-GFP nanobody. تحليل SDS-PAGE للكسور المستخلصة المصبوغة بـ Coomassie Blue. المسار M: مؤشر الوزن الجزيئي. المسار a: كسر استخلاص anti-GFP يوضح وجود 3C protease. المسار b: بروتين ancTREK1 المُنقى بعد التركيز. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| كاشف | حجم لـ 50 µL تفاعل | التركيز النهائي |
| ماء مقطر مزدوج التقطير | أضف إلى 50 µL | — |
| 5× Phusionعلامة تجارية مسجلة محلول منظم لكروماتوغرافيا الغاز | 10 µL | 1× |
| dNTPs (بتركيز 10 ملي مولار لكل منها) | 1 µL | 200 µM كل واحد |
| البادئ الأمامي (10 µM) | 2.5 µL | 0.5 µM |
| البادئ العكسي (10 µM) | 2.5 µL | 0.5 µM |
| الحمض النووي القالبي (20 نانوغرام/µL) | 2 µL | ٠.٨ نانوغرام/µL |
| Phusionالعلامة التجارية إنزيم بوليميراز DNA عالي الدقة | 0.5 µL | ٠,٠٢ وحدة/µL |
الجدول 3: إعداد تفاعل البوليميراز المتسلسل (PCR) لتضخيم ancTREK1. تكوين الكاشف، والأحجام، والتركيزات النهائية المستخدمة لتضخيم تسلسل DNA الخاص بـ ancTREK1 باستخدام نظام DNA polymerase عالي الدقة.
| الخطوة | درجة الحرارة | الوقت | الدورات |
| المسخ الأولي | 98°C | 3 min | 1 |
| المسخ | 98°C | 30 s | 30 |
| الارتباط | 68°C | 30 s | 30 |
| التمديد | 72°C | 30 s | 30 |
| التمديد النهائي | 72°C | 3 min | 1 |
| الحفظ | 12°C | حفظ | — |
الجدول 4: ظروف دورات PCR لتضخيم ancTREK1. معلمات الدورة الحرارية المستخدمة لتضخيم تسلسل DNA الخاص بـ ancTREK1، بما في ذلك خطوات المسخ، والارتباط، والاستطالة، والاستطالة النهائية.
| المكون | هضم القطعة المدرجة (50 µL) | هضم الناقل وإزالة الفوسفات (50 µL) |
| ddH₂O | حتى 50 µL | حتى 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| DNA | ناتج PCR لـ ancTREK1 (2 µg) | DNA للناقل pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
الجدول 5: هضم إنزيمي مقيد للمدرج والناقل لاستنساخ ancTREK1. ظروف التفاعل للهضم المقيد لناتج PCR الخاص بـ ancTREK1 وناقل التعبير باستخدام إنزيمي EcoRI و NotI. يتضمن هضم الناقل خطوة إضافية لإزالة الفوسفات باستخدام الفوسفاتاز القلوي لمنع الربط الذاتي.
| مكوّن | الكمية (20 µL تفاعل) |
| ماء مقطر مزدوج (ddH₂O) | إلى 20 µL |
| محلول منظم تراكيز 10× لإنزيم T4 DNA Ligase | 2 µL |
| حمض DNA المدرج لـ ancTREK1 (843 زوجاً قاعدياً) | ١٠ نانوجرام |
| الحمض النووي لناقل pEG BacMam C-term 3C eGFP His8 (7673 زوج قاعدي) | 30 نانوغرام |
| إنزيم T4 DNA Ligase | 1 µL |
الجدول 6: ظروف ربط الناقل-المدرج لاستنساخ ancTREK1. خليط التفاعل لربط المدرج ancTREK1 في ناقل التعبير pEG BacMam بنسبة مولية 1:3 باستخدام T4 DNA ligase.
| المكوّن | التركيز النهائي | الكمية (لتحضير 5 mL) |
| ddH₂O | — | إلى 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| مثبط البروتياز PMSF (100 mM) | 1 mM | 50 µL |
| مثبط البروتياز Leupeptin (1 mg/mL) | 1 µg/mL | 5 µL |
| مثبط البروتياز Aprotinin (1 mg/mL) | 1 µg/mL | 5 µL |
| مثبط البروتياز Pepstatin A (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.10% | 250 µL |
الجدول 7: تركيب محلول التحلل لاستخلاص بروتينات الغشاء.تركيبة محلول التحلل المستخدمة لإذابة بروتينات الغشاء، بما في ذلك الأملاح، وعوامل التدرج، ومثبطات البروتياز، والنوكلياز، والمنظفات. ملاحظة: يجب تحضير المحاليل المنظمة حديثاً قبل الاستخدام.
| منظم التوازن (الحجم الإجمالي 10 mL) | ||
| المكوّن | التركيز النهائي | الكمية |
| ddH₂O | — | إلى 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| منظم الغسل (الحجم الإجمالي 10 mL) | ||
| المكوّن | التركيز النهائي | الكمية |
| ddH₂O | — | إلى 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| منظم الاستخلاص (الحجم الإجمالي 10 mL) | ||
| المكوّن | التركيز النهائي | الكمية |
| ddH₂O | — | إلى 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
الجدول 8: تركيبات منظمات IMAC لتنقية ancTREK1.تركيبات منظمات الموازنة والغسل والاستخلاص المستخدمة في تنقية ancTREK1 بواسطة كروماتوغرافيا الألفة للأيونات المعدنية المثبتة. ملاحظة: يمكن تخزين المحاليل عند 4°C لمدة تصل إلى ستة أشهر.
| المحلول المنظم 1 (الحجم الإجمالي 10 مل) | ||
| مكوّن | التركيز النهائي | الكمية |
| ماء مقطر مزدوج θH₂O | — | إلى 10 مل |
| كلوريد البوتاسيوم (1 مولار) | ٢٠٠ مللي مولار | ٢ مل |
| تريس-حمض الهيدروكلوريك (Tris-HCl) بأس هيدروجيني 8 (1 مولار) | 20 مللي مولار | 200 µL |
| إن-دوديسيل-بيتا-دي-مالتوزيد (DDM، 10%) | 0.05% | 50 µL |
| كوليستيريل هيميسوكسينات (CHS, 2%) | 0.01% | 50 µL |
| المحلول المنظم 2 (الحجم الإجمالي 10 مل) | ||
| مكوّن | التركيز النهائي | الكمية |
| ماء مقطر مزدوج (ddH₂O) | — | إلى 10 مل |
| كلوريد البوتاسيوم (1 مولار) | 500 ملي مولار | 5 مل |
| تريس-حمض الهيدروكلوريك (Tris-HCl) بأس هيدروجيني 8 (1 مولار) | 20 ميلي مولار | 200 µL |
| ن-دوديسيل-بيتا-د-مالتوزيد (DDM، 10%) | 0.05% | 50 µL |
| كوليستريل هيميسوكسينات (CHS، 2%) | 0.01% | 50 µL |
الجدول 9: تركيبات المحاليل المنظمة لكروماتوغرافيا الألفة للجسم النانوي المضاد لـ GFP. تركيبات المحاليل المنظمة المستخدمة لتنقية ancTREK1 باستخدام كروماتوغرافيا الألفة للجسم النانوي المضاد لـ GFP. ملاحظة: يمكن تخزين المحاليل عند 4°C لمدة تصل إلى ستة أشهر.
5. تسجيل نشاط القنوات الأيونية
- تقييم جودة الغشاء
- أغلق غطاء قفص فاراداي.
- طبق موجة جهد مثلثية (100 mV، 10 Hz) لتقييم سعة الغشاء.
- طبق خطوات جهد (بزيادات ±20 mV حتى ±200 mV) لتقييم مقاومة الغشاء.
- راقب قيم التيار والضوضاء.
ملاحظة: استخدم معدل أخذ عينات 5 kHz وترشيح تمرير منخفض 2.5 kHz ما لم يُطلب غير ذلك.
- تسجيل نشاط ancTREK1
- خفف بروتين ancTREK1 في محلول التسجيل ليصل إلى ~2 µg/mL.
ملاحظة: أثناء التخفيف، قم بإجراء تخفيفات متوسطة في Buffer 1 حسب الحاجة للحفاظ على تركيز المنظف أعلى من التركيز المذيل الحرج (CMC) قبل التخفيف النهائي في محلول التسجيل. - أضف 1 µL من محلول البروتين المخفف إلى حجرة cis بالقرب من فتحة الحاجز.
ملاحظة: يُعرَّف جهد الغشاء على أنه Vcis − Vtrans. لم يتم تحديد اتجاه القناة بشكل مباشر في هذه الدراسة؛ ولذلك، تُوصف التسجيلات فيما يتعلق بقطبية الجهد المطبق بدلاً من تعيين جانب الغشاء. - طبق خطوات جهد بزيادات ±20 mV حتى ±120 mV.
- راقب أحداث إدراج القنوات.
ملاحظة: يُستدل على إدراج القناة من خلال انتقالات تيار منفصلة بين حالتي الإغلاق والفتح. إذا لم يحدث إدراج، أضف المزيد من البروتين أو أعد تشكيل الغشاء. إذا أُدرجت قنوات متعددة، قم بتمزيق الغشاء وتقليل تركيز البروتين.
- خفف بروتين ancTREK1 في محلول التسجيل ليصل إلى ~2 µg/mL.
النتائج
خصائص التيار-الجهد (I-V) لأغشية PLB
تؤدي الطبيعة الكارهة للماء المتأصلة في أغشية الطبقة الثنائية إلى جعلها غير نفاذة للأنواع المشحونة. ومع ذلك، فإن تطبيق مجال كهربائي خارجي يمكن أن يحفز تكوين مسام عابرة بحجم النانومتر، مما يؤثر بالتالي على نفاذية الغشاء وموصليته33. ولتقييم جودة الطبقات الثنائية الاصطناعية المكونة من ليبيدات 1,2-diphytanoyl-sn-glycero-3-phosphocholine، تم تقييم سعة الغشاء، ومقاومته، وخصائص I–V في غياب البروتينات المدرجة. تم تطبيق سلسلة من خطوات الجهد تتراوح من ±20 إلى ±200 mV (بزيادات قدرها ±20 mV)، وتم تسجيل التيارات عبر الغشائية الناتجة. تم أخذ عينات من البيانات بتردد 5 kHz وتم ترشيحها بمرشح تمرير منخفض عند 2.5 kHz.
تمثل سعة الغشاء (Cm) ومقاومة الغشاء (Rm) معاملات أساسية لتقييم جودة الطبقة المزدوجة. يمكن وصف PLB بدائرة مكافئة من مقاومة ومكثف (RC)، حيث يعمل الغشاء كمكثف على التوازي مع مقاومة34. ويعكس المكون السعوي قدرة الغشاء على تخزين الشحنة، بينما يعكس المكون المقاوم نفاذية الأيونات. ويؤدي تطبيق شكل موجي لجهد مثلثي إلى توليد استجابة تيار سعوي مربعة الشكل، وتكون هذه الاستجابة متناسبة مع سعة الغشاء وفقاً لما يلي:
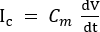 (1)
هنا، تمثل Cm سعة الغشاء، وتمثل V الجهد المطبق، وتمثل t الزمن. بعد تكوين الغشاء، يمكن أن تزداد قيم السعة بمرور الوقت بسبب الترقق التدريجي للطبقة المزدوجة35. وباعتبار الغشاء كمكثف لوحي متوازي، فإن السعة ترتبط بمساحة الغشاء وسماكته وفقاً لما يلي:
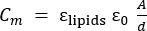 (2)
هنا، يمثل εlipids ثابت العزل الكهربائي للنواة الدهنية (~2)، ويمثل ε0 سماحية الفضاء الحر، بينما تمثل A مساحة الغشاء، وd سمك الغشاء36,37.
تم تحديد مقاومة الغشاء باستخدام قانون أوم33:
 (3)
هنا، يمثل V الجهد المطبق ويمثل Rm مقاومة الغشاء. وفي حالة غياب القنوات الأيونية، يظل تيار الغشاء قريباً من 0 pA، وهو ما يقابل قيم مقاومة في نطاق الغيغا أوم (GΩ)33.
أظهرت العلاقة بين التيار والجهد (I–V) سلوكاً خطياً (أومياً) بين 0 و ±200 mV بالنسبة لأجهزة BLMchipMM ذات فتحات بقطر 75 و 100 µm. وأسفر التوافق الخطي للبيانات عن قيم لمقاومة الغشاء بلغت 847 ± 16 GΩ (العدد = 6) للفتحة ذات قطر 75 µm (الشكل 8A، الدوائر) و 980 ± 32 GΩ (العدد = 7) للفتحة ذات قطر 100 µm (الشكل 8A، المربعات). أما قيم ضوضاء جذر متوسط المربعات (RMS)، التي قيست عبر مقاطع مدتها 3 s من تتبع التيار، فقد بلغت 3.1 ± 2 pA (العدد = 7) للفتحة ذات قطر 100 µm و 2.6 ± 0.1 pA (العدد = 6) للفتحة ذات قطر 75 µm. كما تم تقييم استقرار الغشاء عن طريق قياس المقاومة على فترات زمنية تبلغ حوالي 2 min تقريباً على مدار مدة إجمالية قدرها 1 h (الشكل 8B). وظلت الأغشية المتكونة جيداً مستقرة باستمرار لمدة تزيد عن 1 h، وهي مدة كافية لمعظم التجارب الفيزيولوجية الكهربائية. وعادةً ما تحملت الأغشية جهوداً مسلطة تصل إلى ±200 mV دون ظهور علامات عدم استقرار، بينما حدث الانهيار بين ±220 و ±300 mV اعتماداً على كل طبقة ثنائية. واعتُبرت الأغشية مناسبة لإدراج البروتين عندما تراوحت قيم السعة بين 40 و 60 pF للفتحات ذات قطر 75 µm، ومن 60 إلى 90 pF للفتحات ذات قطر 100 µm، مع قيم تيار تبلغ ≤0.5 pA عند 100 mV.
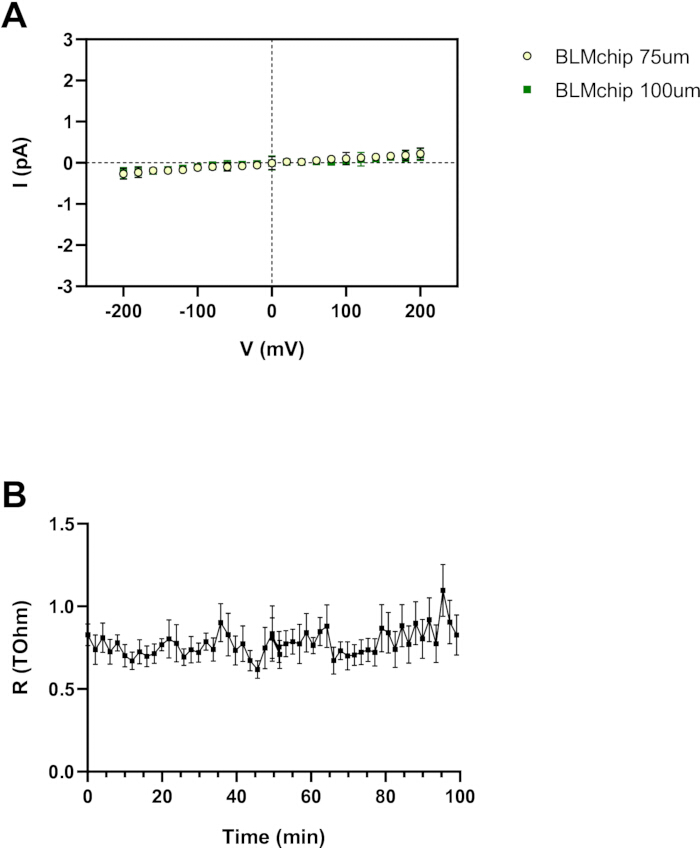
الشكل 8: التوصيف الكهربائي لـ PLBs. (A) علاقات التيار-الجهد (I–V) للطبقات الثنائية المتكونة على فتحات بقطر 75 µm و 100 µm، والتي تظهر سلوكاً خطياً (أومياً) بين ±200 mV. يعطي الانحدار الخطي قيم مقاومة غشائية بلغت 847 ± 16 GΩ (n = 6) و 980 ± 32 GΩ (n = 7)، على التوالي. (B) تقييم استقرار الغشاء من خلال مراقبة المقاومة على مدار 1 h بفواصل زمنية قدرها 2 min. تظل الأغشية مستقرة حتى ±200 mV وتتمزق عند جهود تتراوح بين ±220 و ±300 mV. البيانات معروضة كمتوسط ± الخطأ المعياري للمتوسط (SEM). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التوصيف الأولي لسلوك القناة المنفردة لـ ancTREK1
تم تنقية بروتين ancTREK1 الاصطناعي وإعادة تشكيله في أغشية ليبيدية مستقرة (PLBs)، وتمت مراقبة نشاط القناة المفردة باستخدام بروتوكولات خطوات الجهد التي تتراوح من −120 إلى 120 mV بزيادات قدرها 20 mV. وكشفت تسجيلات القناة المفردة (الشكل 9A والشكل 9B) عن سلوك الوميض المميز لقنوات K2P38. وعند 80 mV، كان متوسط سعة التيار 13.02 ± 0.78 pA (n = 5)، بينما زادت سعة التيار عند −80 mV إلى −18.72 ± 0.25 pA (n = 5) (الشكل 9C). وأظهرت علاقة I–V الناتجة تيارات قناة مفردة قابلة للقياس عند كل من الجهود الموجبة والسالبة في ظل ظروف بوتاسيوم متماثلة بتركيز 200 mM وخالية من Mg2+ (الشكل 9D). ونظرًا لأن سعات التيار قد قُدِّرت من مدرجات تكرارية لجميع النقاط لتسجيلات تم الحصول عليها بتردد 5 kHz وتم ترشيحها بمرشح تمرير منخفض عند 2.5 kHz، فإن علاقة I–V هذه تُعرض كإثبات وصفي للمبدأ وليس كتوصيف بيوفيزيائي شامل.
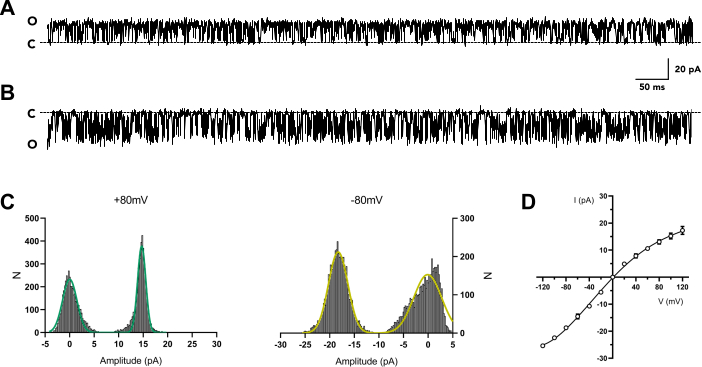
الشكل 9: نشاط القناة الواحدة لبروتين ancTREK1 الاصطناعي. (أ و ب) آثار تيار ممثلة للقناة الواحدة تم تسجيلها عند 80 mV و −80 mV، على التوالي. تشير الخطوط المنقطة إلى مستوى القناة المغلقة. (ج) مخططات تكرارية للسعة لجميع النقاط للجهود الموجبة (يساراً) والسالبة (يميناً). (د) العلاقة بين التيار والجهد (I–V) لبروتين ancTREK1 تحت ظروف بوتاسيوم (K+) متماثلة بتركيز 200 mM بدون كاتيونات ثنائية التكافؤ. تم ملاءمة المنحنى باستخدام متعدد حدود من الدرجة الرابعة، وتم اشتقاق قيم الموصلية من الميل عند ±80 mV. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
على الرغم من أن ancTREK1 يفتقر إلى المناطق الطرفية N و C الممتدة مقارنة بقنوات TREK1 الثديية، إلا أنه ظل نشطاً وظيفياً عند إعادة التكوين. وبخلاف TREK1 الثديي، الذي يظهر أنماط توصيل عالية ومنخفضة (132 ± 5 pS و 41 ± 5 pS عند الجهود الموجبة، على التوالي)39، أظهر ancTREK1 نمط التوصيل الكبير فقط. وكان توصيل القناة المنفردة عند الجهود الموجبة 112.8 ± 10.8 pS (عند 80 mV، n = 5)، وهو ما يتوافق مع القيم المسجلة لقنوات TREK (من 85–130 pS تحت ظروف البوتاسيوم المتماثلة)38,39,40,41. وعند الجهود السالبة، زاد التوصيل إلى 205.6 ± 2.05 pS (عند −80 mV، n = 5)، بما يتفق مع سلوك TREK1 المسجل سابقاً39. والجدير بالذكر أن ancTREK1 أظهر احتمالية فتح معيّرة (NPo) أعلى مقارنة بقياسات TREK1 التي تم الحصول عليها باستخدام تكوينات الرقعة المستأصلة42. وأظهرت العلاقة بين NPo والجهد زيادة في نشاط القناة عند الجهود الموجبة، حيث وصلت إلى 0.78 ± 0.02 (n = 5) عند 80 mV. وفي المقابل، انخفضت NPo عند الجهود السالبة، حيث بلغت القيم 0.53 ± 0.04 عند −80 mV و 0.28 ± 0.03 عند −120 mV (الشكل 10).
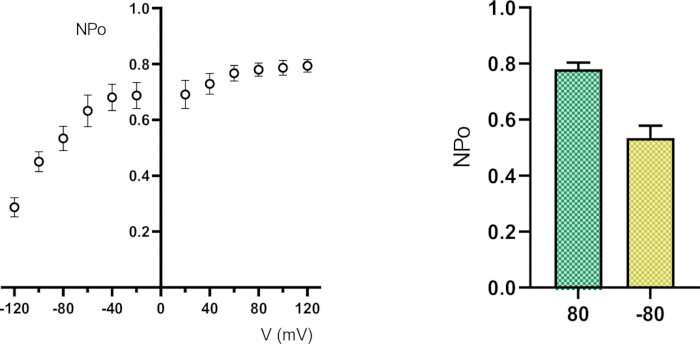
الشكل 10: تحليل اعتماد نشاط القناة المفردة لـ ancTREK1 على الجهد. احتمالية الفتح المعيرة (NPo) كدالة في جهد الغشاء (يساراً) ومقارنة لـ NPo عند 80 mV و −80 mV (يميناً)، مما يوضح زيادة فتح القناة عند الجهود الموجبة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1. تسلسل الأحماض الأمينية لقناة البوتاسيوم الاصطناعية السلفية ذات نطاقي المسام (K2P) (ancTREK1). تسلسل الأحماض الأمينية كامل الطول لـ ancTREK1 المستخدم في التسجيلات الفيزيولوجية الكهربائية. تم إعادة بناء التسلسل عن طريق استنتاج التسلسل السلفي من مجموعة بيانات منقحة لأفراد عائلة TREK/TRAAK، بما في ذلك التسلسلات المتماثلة التي تم جمعها من قواعد بيانات UniProt وNCBI، والتي تم ترشيحها بناءً على أنماط المسام المحفوظة، ومحاذاتها، وتحليلها باستخدام علم تطور السلالات وفق طريقة أقصى احتمالية.يرجى النقر هنا لتحميل هذا الملف.
المناقشة
في هذه الدراسة، استخدمنا تقنية PLB لتقييم الخصائص الفيزيولوجية الكهربائية لقناة K2P اصطناعية على مستوى الجزيء الواحد. ومن بين نماذج الدهون المستوية المختلفة الموصوفة في الأدبيات العلمية، ركزنا على تكوين BLMs، والتي يتم طلاؤها فوق فتحة يتراوح قطرها بين 50 و 140 µm، محفورة على سطح رأسي غير قطبي يفصل بين حجرتين مائيتين. يتيح هذا التكوين محاكاة بيئة الغشاء الخلوي مع الحفاظ على التحكم في المعايير التجريبية، بما في ذلك تحضير الغشاء الدهني وتركيب الإلكتروليت (على سبيل المثال، القوة الأيونية و pH)3. وقد أعدنا تكوين BLMs باستخدام طريقة Montal–Mueller (الطي)5، والتي يتجمع فيها الغشاء تلقائياً عندما تلتحم طبقتان أحاديتان من الدهون، كانتا قد فُرشتا مسبقاً عند السطح الفاصل بين الهواء والماء للمحلولين المائيين، فوق الفتحة عن طريق رفع مستوى الماء.
إن البروتوكول المقدم هنا لتكوين الغشاء بديهي للغاية؛ ومع ذلك، هناك عدة خطوات حاسمة تؤثر بقوة على نجاح التجربة. لضمان التوصيل الكهربائي السليم بين BLMchipMM والمضخم، من الضروري تجنب كلورة نهايات أسلاك Ag/AgCl التي يتم إدخالها في مقابس PCB. وأثناء تجميع BLMchipMM، قد يؤدي الموضع غير الصحيح للأسلاك إلى ملامسة هيكل المضخم، مما يؤدي إلى حدوث دوائر قصيرة وتشبع الإشارة. كما يعد إجراء المعالجة المسبقة للفتحة عاملاً حاسماً آخر: إذ قد تؤدي القوة المفرطة أثناء تطبيق محلول المعالجة المسبقة إلى تلف الحاجز البوليميدي، بينما يمكن أن يؤدي التعامل غير السليم مع محلول الإلكتروليت - وخاصة نقع منطقة الفتحة - إلى إعاقة تكوين الغشاء. علاوة على ذلك، فإن التنظيف الدقيق لغرفة تسجيل BLMchipMM ضروري لضمان قابلية تكرار النتائج. حيث يضمن استخدام كحول الإيزوبروبيل بتركيز 100% متبوعاً بالشطف الجيد والتجفيف التام عدم تداخل الرواسب مع التجارب اللاحقة.
من الممكن إجراء عدة تعديلات على البروتوكول. فبينما يمثل الكلورة عن طريق النقع في المبيض نهجاً عملياً وشائع الاستخدام، يمكن أيضاً توظيف طرق بديلة مثل الطلاء الكهربائي43. وبالمثل، يمكن إجراء تغييرات في المعالجة المسبقة وتحضير الدهون. تتكون محاليل المعالجة المسبقة القياسية عادةً من ألكانات طويلة السلسلة مذابة في مذيبات هيدروكربونية متطايرة36؛ ورغم أن محلول hexadecane بنسبة 1% في n-hexane يُستخدم بشكل شائع، إلا أن مذيبات أخرى قد تكون مناسبة. كما يمكن تكييف تركيب الدهون بناءً على المتطلبات التجريبية. وبينما توفر دهون DPhPC استقراراً مثالياً للغشاء، يمكن استخدام خلائط دهنية بديلة، بما في ذلك التركيبات الطبيعية أو الاصطناعية36. وتتمثل إحدى المزايا الرئيسية لطبقات الدهون الثنائية العمودية التي يتم تشكيلها عبر طريقة الطي في القدرة على توليد أغشية غير متماثلة، حيث تتكون كل ورقة من أنواع دهنية مختلفة5,22، وهي سمة معروفة بتأثيرها على وظيفة بروتين الغشاء.
تتضمن استكشاف أخطاء تكوين الغشاء وإصلاحها عمومًا إجراء تعديلات على مستويات الطور المائي. إذا لم يحدث تكوين الغشاء في البداية، فإن خفض ورفع مستوى المحلول المنظم بشكل متكرر في أحد المقصورات يمكن أن يسهل تجميع الطبقة الثنائية. وفي حال عدم نجاح ذلك، يمكن أن يؤدي تطبيق فقاعة هواء فوق الفتحة إلى تعزيز إعادة توزيع الدهون وتكوين الغشاء. وعادةً ما يشير الفشل المستمر إلى مشكلات تتعلق بالمعالجة المسبقة أو التلوث، وفي هذه الحالة يُوصى بتنظيف غرفة التسجيل وإعادة بدء التجربة.
تتكون المكونات الأساسية لهذا الإعداد من المضخم المدمج eNPR 100 kHz وBLMchipMM. يعد المضخم نظام تثبيت جهد (voltage-clamp) مدمجاً ومنخفض الضجيج يغني عن الحاجة إلى أجهزة خارجية إضافية، بما في ذلك أقفاص فاراداي الخارجية، حيث يوفر غلاف المضخم نفسه حماية فعالة من التداخل الكهرومغناطيسي. أما BLMchipMM فهي غرفة تسجيل مصغرة ومجمعة مسبقاً، مدمجة مع لوحة دوائر مطبوعة (PCB) للاتصال المباشر بالمضخم. وتتكون من حجرتين على شكل حرف C يفصلهما حاجز من البوليميد يحتوي على فتحة مستدقة مثقوبة بالليزر حيث يتكون الغشاء الاصطناعي. وتؤدي الأبعاد المختزلة للنظام، بحجم حجرات يبلغ حوالي 110 µL، إلى خفض استهلاك الكواشف بشكل كبير وتقليل السعة الكهربائية الجوهرية، مما يؤدي بدوره إلى تحسين جودة الإشارة. بالإضافة إلى ذلك، يمكن إعادة استخدام الجهاز عدة مرات دون تفكيكه عند اتباع إجراءات التنظيف المناسبة، مما يقلل من التباين ويعزز إمكانية تكرار التجارب.
على الرغم من هذه المزايا، يجب مراعاة بعض القيود؛ إذ لا يتضمن الإعداد الحالي وحدات متكاملة للتحكم في درجة الحرارة أو الضغط أو التروية. وقد أفادت التقارير أن التوتر الغشائي الجوهري يؤثر على القنوات الحساسة للميكانيكا مثل TREK144,45,46؛ ومع ذلك، فإن الإعداد الحالي لا يتضمن تحكماً موجهاً في التوتر الغشائي، ولم يتم استخلاص أي استنتاجات ميكانيكية هنا. وبشكل عام، توفر هذه المنصة نظاماً قوياً وسهل الوصول لتسجيل نشاط القنوات الأيونية في الأغشية الاصطناعية. في هذه الدراسة، بحثنا في قناة K2P الاصطناعية ancTREK1، وهي قناة سلفية مشتقة حاسوبياً من الفصيلة الفرعية TREK. وتظهر البيانات المسجلة أن بروتين ancTREK1 المُنقى والمعاد تركيبه في PLBs يُبدي سلوك قناة مفردة يتفق مع خصائص الموصلية المبلغ عنها والمماثلة لـ TREK1. وتحت ظروف بوتاسيوم متماثلة بتركيز 200 mM وخالية من Mg2+، تُظهر القناة علاقة I–V قابلة للقياس، بقيم سعة تبلغ حوالي 13 pA عند 80 mV و −19 pA عند −80 mV. بالإضافة إلى ذلك، يُظهر ancTREK1 نمط الموصلية العالية المميز الملاحظ في قنوات TREK1، مع موصلية أعلى عند الجهود السالبة (~205.6 pS) مقارنة بالجهود الموجبة (~112.8 pS). ومن الملاحظ أن ancTREK1 يُظهر زيادة في NPo عند الجهود الموجبة (0.78 عند 80 mV) وانخفاضاً في NPo عند الجهود السالبة (0.53 عند −80 mV و 0.28 عند −120 mV)، وهو ما يختلف عن الملاحظات في تكوينات الرقعة المستأصلة42. تدعم هذه النتائج استخدام هذا النظام لإثبات مبدأ تسجيل القنوات المفردة لبروتينات الغشاء المعاد تركيبها.
الإفصاحات
يشغل F.T. منصب الرئيس التنفيذي، بينما يشغل A.P. منصب موظف في شركة Elements S.r.l. ويقر جميع المؤلفين الآخرين بعدم وجود أي تضارب في المصالح.
شكر وتقدير
نشكر Sofia Diletta Guzzeloni على المساعدة في إجراء عملية عفن الخلايا (cell transfection). كما نعرب عن امتناننا لموظفي Elements، الدكتور Leon Juarez والدكتور Michelangelo Paci. تم دعم هذا العمل من قبل قسم الطب الجزيئي في جامعة Pavia، إيطاليا، بموجب مبادرة Dipartimenti di Eccellenza (2023–2027)، ومن مؤسسة Cariplo (#2019-1809)، وعن طريق برنامج أبحاث PNRR رقم CN00000013 "المركز الوطني للحوسبة عالية الأداء والبيانات الضخمة والحوسبة الكمومية" الممنوح لـ M.L.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) | Avanti Polar Lipids | 850356P | تكوين طبقات ليبيدية اصطناعية مزدوجة |
| 2-Propanol (≥99.5%) | Honeywell | 24137-5L | تنظيف جهاز BLMchipMM |
| Agarose | Fisher BioReagents | BP160-500 | تحضير هلامات الأجاروز |
| نظام الرحلان الكهربائي الأفقي لهلام الأجاروز | BTLabSystems | BT102 | فصل قطع DNA |
| Ampicillin | Fisher BioReagents | BP1760-25 | اختيار البكتيريا المحولة |
| راتنج Sepharose للجسم المضاد النانوي Anti-GFP (محضر محلياً) | — | — | التنقية بالتقارب للبروتينات المدمجة مع GFP |
| Anza Alkaline Phosphatase | Invitrogen | IVGN2208 | إزالة مجموعة الفوسفات من الناقل |
| Anza EcoRI | Invitrogen | IVGN0116 | الهضم بالإنزيمات القاطعة |
| Anza NotI | Invitrogen | IVGN0014 | الهضم بالإنزيمات القاطعة |
| Anza Red Buffer (10×) | Invitrogen | IVGN2008 | محلول منظم للهضم بالإنزيمات القاطعة |
| مثبط البروتياز Aprotinin | Fisher Scientific | 15996008 | منع تحلل البروتين |
| جهاز طرد مركزي مكتبي | Eppendorf | EP5420000164 | ترسيب الخلايا وتحضير العينات |
| BLMchipMM | Elements s.r.l. | — | تكوين طبقات ليبيدية مزدوجة مستوية |
| Cholesteryl hemisuccinate (CHS) | Anatrace | CH210 | تثبيت بروتينات الغشاء |
| Coomassie Brilliant Blue | Sigma-Aldrich | 1125530025 | صبغ البروتين |
| مبيض منزلي شائع | — | — | كلورة أسلاك Ag |
| DNase I | Sigma-Aldrich | 11284932001 | تقليل لزوجة المستخلص الخلوي |
| ماء مقطر مزدوج | — | — | تحضير المحاليل المنظمة والمحاليل الأخرى |
| Ethanol (نقي, 99.9%) | Girelli Alcool s.r.l. | — | تنظيف أسلاك Ag/AgCl |
| Ethidium bromide | Sigma-Aldrich | 1116080030 | صبغ DNA |
| ورق صنفرة ناعم للغاية | — | — | إزالة طلاء Ag/AgCl من الأسلاك |
| مضخم eNPR 100 kHz | Elements s.r.l. | — | تسجيلات الفيزيولوجيا الكهربائية |
| طقم Gel-Out لاستخلاص DNA من الأجاروز | A&A Biotechnology | 023-250 | تنقية DNA |
| سلم DNA GeneRuler 1 kb | Thermo Fisher Scientific | SM0311 | مرجع لحجم DNA |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | التعبير عن بروتين ancTREK1 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | عامل تنظيم pH |
| Hexadecane (≥99%) | Sigma-Aldrich | H6703-100ML | المعالجة المسبقة للفتحة |
| Hexane (≥99%) | Sigma-Aldrich | 139386-100ML | مذيب ليبيدي |
| صبغة تحميل DNA محضر محلياً (5×) | — | — | تحضير عينة DNA |
| محلول Laemmli SDS المنظم محضر محلياً (6×) (مختزل) | — | — | تحضير عينة البروتين |
| محلول إزالة الصبغة محضر محلياً | — | — | إزالة الصبغة من هلامات SDS-PAGE |
| بروتياز HRV-3C محضر محلياً | — | — | قطع البروتينات المدمجة |
| محلول تشغيل SDS-PAGE المنظم محضر محلياً (10×) | — | — | محلول منظم للرحلان الكهربائي SDS-PAGE |
| Imidazole | Alfa Aesar | A10221 | شطف البروتينات المدمجة مع His |
| أعمدة تنقية مدمجة في الدفعة | — | — | سير عمل تنقية البروتين |
| حاضنة هزازة Innova44 | New Brunswick Innova | M1282 | نمو المزارع الخلوية |
| KCl | Honeywell | 31248-1KG | تحضير الإلكتروليت والمحلول المنظم |
| مرق LB (Lennox) | Condalab | 1231 | مزرعة بكتيرية |
| مثبط البروتياز Leupeptin | Thermo Scientific | 78435 | منع تحلل البروتين |
| سداسي هيدرات كلوريد المغنيسيوم | Acros Organics | 447700010 | مكون للمحلول المنظم |
| مقياس طيف ضوئي Nanodrop | DeNovix | DS-11 | تقدير كمية DNA والبروتين |
| n-Dodecyl-β-D-maltoside (DDM) | NeoBiotech | NB-19-0056-25G | إذابة بروتينات الغشاء |
| راتنج Ni Sepharose عالي الأداء | Cytiva | 17526801 | تنقية IMAC |
| حاسوب محمول | — | — | التحكم في الأجهزة والحصول على البيانات |
| جهاز طرد مركزي فائق Optima LE-80K | Beckman | 365668 | عزل جزء الغشاء |
| Pentane (≥99%) | Sigma-Aldrich | 236705-100ML | مذيب ليبيدي |
| مثبط البروتياز Pepstatin A | Thermo Scientific | 78436 | منع تحلل البروتين |
| محلول Phusion GC المنظم (5×) | Thermo Fisher Scientific | F519 | محلول منظم لـ PCR |
| إنزيم Phusion High-Fidelity DNA Polymerase | Thermo Fisher Scientific | F530S | تضخيم PCR |
| مثبط البروتياز PMSF | Thermo Scientific | 36978 | حماية البروتين أثناء التحلل |
| Polyethylenimine (PEI) | Clinisciences | 24765-100 | كاشف ترانسفكشن |
| هلام ProteinEle مسبق الصب Tris-Glycine (4–20%) | TransGen Biotech | DG101-01-V2 | فصل البروتين |
| نظام الرحلان الكهربائي لهلام SDS-PAGE | Bio-Rad | 1658002FC | الرحلان الكهربائي للبروتينات |
| Sodium butyrate | Fisher Scientific | A11079 | معزز للتعبير البروتيني |
| T4 DNA ligase | Thermo Fisher Scientific | EL0011 | ربط DNA |
| محلول T4 DNA ligase المنظم (10×) | Thermo Fisher Scientific | B69 | محلول منظم للربط |
| جهاز دورة حرارية (Mastercycler Nexus) | Eppendorf | 6331000025 | تضخيم PCR |
| Tris base | Sigma-Aldrich | T1503-1KG | تحضير المحلول المنظم |
| أجار Tryptone SOYA مع الليسيثين وبوليسوربات 80 | HiMedia | M449-5KG | زراعة البكتيريا في أطباق |
| سلكان من Ag | Elements s.r.l. | — | أقطاب كهربائية للفيزيولوجيا الكهربائية |
| مركز Ultra-spin (بحد قطع 50 kDa) | Merck Amicon | UFC8050 | تركيز البروتين |
| ناقل التعبير pEG BacMam | Addgene | 160687 | التعبير البروتيني |
| كابل USB | — | — | التوصيل بين المضخم والحاسوب |
المراجع
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
إعادة الطباعة والأذونات
