حددت هذه الدراسة جينات مشتركة، ومسارات بيولوجية، وارتباطات مناعية، وأهداف علاجية محتملة تكمن وراء مرض السكري من النوع الثاني وأمراض القلب والأوعية الدموية التصلب الشرايي، من خلال المعلوماتية الحيوية المتكاملة والتحقق التجريبي.
مقالة بحثية
الآليات الجزيئية الشائعة والأهداف الدوائية المرشحة في مرض السكري من النوع الثاني وأمراض القلب الوعائي التصلب الشرايين
في هذه المقالة
ملخص
الملخص
فحصت هذه الدراسة الآليات الكامنة وراء التعافي بين مرض السكري من النوع الثاني (T2DM) ومرض القلب والأوعية الدموية التصلب الشرايين (ASCVD)، مع تحديد الأهداف العلاجية المحتملة. تم استخراج جينات معبرة تفاضليا شائعة (C-DEGs) بين T2DM وASCVD من مجموعات البيانات GSE78721 و GSE12288. تم إجراء تحليلات إثراء مسارات الجينات في علم الجينات (GO) وموسوعة كيوتو للجينات والجينومات (KEGG)، وبناء شبكات تفاعل البروتين (PPI)، وتحديد الجينات المحركية، وتحليل قاعدة بيانات تفاعل الأدوية والجينات (DGIdb). تم تحليل العلاقة بين C-DEGs في المركز والخلايا المتسللة للمناعة باستخدام طريقة CIBERSORT. تم قياس مستويات تعبير C-DEGs في المحور من خلال تحليلات qRT-PCR وتحليل البقعة الغربية. تم تحديد ما مجموعه 32 جينا من C-DEGs، تضم 20 جينا مرتفعا و12 جينا منخفضا. تم إثراء C-DEGs بشكل رئيسي في المسارات الرئيسية، بما في ذلك التهاب عضلة القلب الفيروسي، واعتلال عضلة القلب البطين الأيمن غير المنتظم، واعتلال عضلة القلب التضخمي، واعتلال عضلة القلب المتوسع. كشف تحليل PPI عن 29 عقدة و39 حافة، مما أدى إلى تحديد ثمانية مراكز C-DEGs (HSP90B1، PLAU، SLPI، TOP3A، NCF4، PRF1، TUBA1C، وCS) عبر كلا مجموعتي البيانات. علاوة على ذلك، أظهرت C-DEGs في المحور (TOP3A، SLPI، NCF4، PRF1، وPLAU) ارتباطات كبيرة مع مستويات الخلايا المتسللة للمناعة. الأدوية التي تستهدف هذه المراكز C-DEGs تقدم مرشحين واعدين لعلاج T2DM وASCVD. بالإضافة إلى ذلك، تم التحقق من صحة تعبير C-DEGs في محور ال Hub عند مستويات mRNA والبروتينات لدى المرضى المصابين ب T2DM وASCVD. سهل تحليل المعلوماتية الحيوية المتكامل فحص الأهداف العلاجية المرشحة والآليات والأدوية لمرض السكري من النوع الثاني وASCVD، مقدما رؤى جديدة حول العلاجات الجزيئية لهذه الحالات.
المقدمة
داء السكري (DM) هو مرض مزمن له أسباب معقدة تتأثر بعوامل وراثية وبيئية مختلفة، ويؤثر حاليا على ما يقدر ب 463 مليون شخص حول العالم، ومن المتوقع أن يرتفع إلى 700 مليون بحلول عام 2045. داء السكري من النوع الثاني (T2DM) هو حالة متعددة العوامل تتميز بمقاومة الأنسولين ونقص نسبي في الأنسولين الناتج عن فشل خلايا بيتا، مما يؤدي إلى ارتفاع السكر في الدم وخسر شحمية الدم، ويشكل 90٪ من حالات السكر الشديد 3,4,5. تعد مقاومة الأنسولين مقدمة رئيسية للعديد من اضطرابات الأيض القلبي الوعائي التي تسهم معا في تطور مرض القلب والأوعية الدموية التصلب الشرايي، وقد تؤثر على توقعه 6,7. ينشأ مرض الشريان التاجي (CAD) بشكل أساسي من التراكم التدريجي للمادة التصلب الشرايي، مما يؤدي إلى تضيق اللمعة وانسداد تدفق الدم8. تصلب الشرايين مدفوع بعدة عوامل، منها فرط الكوليسترول والسكري. تسلط الأعباء البشرية والمالية الكبيرة المرتبطة بمرض النوع الثاني ومرض البديل البديل والتنمية البدنية، إلى جانب التحديات في إدارتهما طويلة الأمد، الضوء على الحاجة الملحة لاستراتيجيات وقائية فعالة.
يواجه المرضى المصابون بمرض الكاسي المسيحي والسكري من النوع الثاني في نفس الوقت خطرا أعلى بشكل ملحوظ للإصابة بالأحداث القلبية11. أمراض القلب والأوعية الدموية (CVD) هي مضاعفات شائعة لمرض السكري من النوع الثاني وتمثل السبب الرئيسي للوفاة بين مرضى السكري من النوع الثاني، حيث يتأثر حوالي 32.2٪ بمرض القلب والأوعية الدموية12. تؤكد الدراسة الفرعية LoDoCo2 أن السكري من النوع الثاني المصاحب يرتبط بزيادة خطر حدوث أحداث قلبية وعائية سلبية كبرى في مجموعات المرض المزمنة13. الأفراد المصابون بالسكري من النوع الثاني معرضون لخطر مرتفع للإصابة ب ASCVD14,15، وأولئك المصابون بمرض الكاسي المزمن الذين يعانون أيضا من السكري يحملون خطرا أكبر بكثيرللأحداث القلبية الوعائية اللاحقة، مما يبرز الحاجة الحرجة غير الملباة لخيارات العلاج المبتكرة.
عدد متزايد من مجموعات البحث تقوم بفحص الجينات المعبر عنها تفاضلا جديدة (DEGs) في T2DM وASCVD من خلال تحليلات شاملة لبيانات النسخ من قواعد بيانات مختلفة. تركز الجهود على توضيح العلاقة بين هذه الأمراض وتحديد الوظائف البيولوجية الفعالة. استكشفت الدراسات الحديثة في المعلوماتية الحيوية مرض السكري من النوع الثاني في علاقتها بحالات أخرى؛ على سبيل المثال، حدد سونغ وآخرون DEGs مشتركة بين T2DM والتهاب المفاصلالعظمي 17، وتنبأ كاستيلو-فيلازكيز وآخرون بالعلاقة بين مرض الزهايمر ومرض DM18، وتم التعرف على جينات ومسارات مهمة في T2DM ومتلازمة المبايض متعددة الكيسات من خلال تحليل المعلوماتية الحيوية19. ومع ذلك، لا تزال الآليات الجزيئية التي تربط T2DM وASCVD غير مفهومة بشكل جيد، مما يبرز أهمية تحديد أهداف علاجية جديدة محتملة لعلاج تطور كلا الحالتين.
تهدف هذه الدراسة إلى تحديد المسارات الجزيئية المشتركة والأهداف العلاجية المحتملة بين T2DM وASCVD بشكل منهجي من خلال إجراء تحليل معلوماتي حيوي متكامل لبيانات النسخ من مجموعات بيانات GSE78721 (T2DM) و GSE12288 (ASCVD). تم اختيار هذه المجموعات لتوفير عينات مطابقة من المرضى ونقاط التحكم لكل مرض، باستخدام منصات ميكروآراي مماثلة لتمكين تحليل مقارن قوي. شمل النهج الحالي تحديد مستويات DEGs الشائعة (C-DEGs)، وإجراء تحليلات التخصيب الوظيفي وتفاعل البروتينات، وتقييم الارتباطات مع تسرب المناعة، والتنبؤ بالأدوية المتفاعلة. بالإضافة إلى ذلك، تم إجراء التحقق التجريبي الأولي. يوفر هذا العمل رؤى جديدة وأهدافا مرشحة لفهم المرض المصاحب بين T2DM وASCVD.
البروتوكول
تمت مراجعة هذا البروتوكول والموافقة عليه من قبل مجلس مراجعة الأخلاقيات المؤسسي لجامعة نينغشيا الطبية (رقم مرجع مجلس المراجعة الداخلية: الأخلاقيات [2023]-YCSKT-002) وامتثال للمبادئ المنصوص عليها في إعلان هلسنكي. تم الحصول على موافقة كتابية من جميع المرضى المشاركين في الدراسة قبل مشاركتهم.
مصادر بيانات التعبير ل T2DM وASCVD
تم الحصول على بيانات التعبير الجيني ل T2DM و ASCVD من مجموعتي البيانات GSE78721 و GSE12288 على التوالي، المستمدة من قاعدة بيانات GEO. استخدمت كلتا المجموعتين بيانات المصفوفات الدقيقة من مصفوفة التعبير الجيني البشري [PrimeView] Affymetrix ومنصات مصفوفة الجينوم البشري [HG-U133A] Affymetrix U133A. تضمنت مجموعة البيانات GSE78721 بيانات تعبير من 68 مريضا من نوع T2DM و62 عينة طبيعية (التفاصيل في الجدول التكميلي 1)، بينما تضمنت مجموعة البيانات GSE12288 بيانات تعبير من 110 عينة من ASCVD و112 ضابطا طبيعيا (التفاصيل في الجدول التكميلي 2). تم تحويل مجسات الجينات إلى رموز جينية مقابلة بناء على معلومات التوضيح على المنصة.
تحديد الجينات المعبر عنها بشكل مختلف في T2DM وASCVD
بعد تنزيل البيانات من قاعدة بيانات GEO، تم تصحيح وتطبيع مصفوفات التعبير الخام ل T2DM وASCVD باستخدام حزمة البرمجيات "ليما" لتحديد DEGs. تم تطبيق عتبة P < 0.05 لفحص DEG. تم تصور نتائج التعبيرات التفاضلية باستخدام حزم 'خريطة الحرارة' و'ggplot2' R لإنشاء خريطة حرارية ومخطط بركاني، على التوالي. تم تحديد C-DEGs بين T2DM وASCVD عبر مخطط فين.
تحليلات وظائف أنطولوجيا الجينات (GO) وموسوعة كيوتو للجينات والجينومات (KEGG) لتحليل مسارات C-DEGs
تم تحديد الوظائف والمسارات البيولوجية من خلال تحليلات إثراء المسارات GO وKEGG. منظمة R package. تم استخدام Hs.eg.db لتحويل أسماء C-DEG إلى معرفات جينية، وأجري تحليل إثراء GO باستخدام حزم R clusterProfiler وenrichplot وggplot2 وGOplot لاستكشاف الوظائف البيولوجية المشتركة ل C-DEGs. لاحقا، أجري تحليل KEGG لتحديد المسارات المشتركة ذات الأهمية المشاركة في الآليات الجزيئية التي تكمن وراء المرض المصاحب ل T2DM وASCVD. تم عرض نتائج إثراء GO وKEGG في مخططات شريطية توضح عدد الجينات، والوصف الوظيفي، وقيم P ، مع دلالة إحصائية تم تعريفها ك P < 0.05.
تحليل شبكة تفاعل البروتين والبروتين (PPI) لتفاعلات C-DEGs
تم تعريف C-DEGs وجينات المركز كجينات مشتركة في هذه الدراسة. لتقييم الارتباطات الوظيفية بين هذه الجينات المشتركة، تم إنشاء شبكة PPI باستخدام قاعدة بيانات STRING (https://string-db.org). بدأ التحليل باختيار "بروتينات متعددة" تحت دالة "SEARCH" وإدخال أسماء C-DEG مع تحديد النوع ك "Homo sapiens". تم تكوين المعلمات الأساسية لوحدات C-DEGs لعرض شبكة تنظيم PPI. تم تنفيذ تصور شبكة PPI باستخدام برنامج Cytoscape (الإصدار 3.9.1) (https://apps.cytoscape.org/)، مما وفر تمثيلا رسوميا للتفاعلات بين C-DEGs. تم تحديد C-DEGs في Hub ضمن شبكة PPI باستخدام إضافة CytoHubba في Cytoscape، استنادا إلى خوارزمية تصنيف Degree.
تحليل تسرب الخلايا المناعية
لفحص الفروق في تسرب الخلايا المناعية بين مجموعة T2DM والمجموعة الضابطة الطبيعية، تم استخدام طريقة CIBERSORT لتقييم وفرة أنواع الخلايا المتسللة للمناعة. تم تطبيق خوارزمية اختبار ويلكوكسون لاحقا لمقارنة نسب هذه الخلايا المناعية المتسللة بين عينات T2DM وعينات التحكم، مما سهل تقييم الفروق الملحوظة. تم تحقيق تصور البيانات من خلال مخططات الكمان. للتحقق من صحة العلاقة بين C-DEGs والخلايا المتسللة المناعية، تم استخدام حزم R مثل limma، scales، tidyverse، و ggplot2 لحساب معاملات ارتباط سبيرمان. قامت هذه الخطوة بقياس العلاقة بين تعبير C-DEG ومستويات تسرب الخلايا المناعية، مع عرض النتائج كخرائط حرارية. تم اعتبار قيمة P أقل من 0.05 ذات دلالة إحصائية.
تحليل تفاعل C-DEGs في المركز مع الأدوية المستهدفة المحتملة
توفر قاعدة بيانات تفاعل الدواء والجين (DGIdb) فهرسا شاملا لتفاعلات الدواء والجينات والملفات الجينية للعوامل العلاجية المعتمدة والمحتملة. في هذه الدراسة، تم إدخال قائمة C-DEGs في المركز في قاعدة البيانات لاسترجاع معلومات التفاعل بين C-DEGs المحور وأدويتها المستهدفة المحتملة، والتي تم تصويرها بعد ذلك باستخدام برنامج Cytoscape.
التحقق التجريبي للجينات الأساسية بواسطة عينات سريرية
وللتحقق تجريبيا من صحة الجينات الأساسية، تم جمع عينات دم محيطية من المشاركين السريريين. شملت مجموعة الدراسة مجموعة تجريبية ومجموعة ضابطة. تكونت المجموعة التجريبية من 15 مريضا تم تشخيصهم بكل من السكري من النوع الثاني ومرض ASCVD، مما يمثل حالة مصاحبة. تكونت مجموعة الضبط من 10 متطوعين أصحاء متطابقين في العمر والجنس بدون تاريخ من السكري أو أمراض القلب والأوعية الدموية أو أمراض جهازية كبيرة أخرى. تم تشخيص جميع المرضى في المجموعة التجريبية بشكل نهائي وفقا للإرشادات السريرية المعتمدة لمرض السكري من النوع الثاني واضطراب انسداد الجلد المزمن.
تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR)
تم عزل الحمض النووي الريبي الكلي باستخدام كاشف تريزول، وتم تصنيع cDNA للسلسلة الأولى باستخدام مجموعة نظام النسخ العكسي. ثم تم تخفيف cDNA لصنع qRT-PCR باستخدام مزيج رئيسي ل PCR باللون الأخضر SYBR، مع عمل GAPDH كأداة تحكم داخلية. تم حساب التغيرات النسبية في الطية في التعبير باستخدام طريقة 2−ΔΔCt . كانت البادئات المستخدمة في التحليل كما يلي: TUBA1C-للأمام: 5′-GACCTCGTGTTGGGGACCGAAT-3′ والعكس: 5′-CGAGGTGAACCCAGAACCAG-3′; NCF4-للأمام: 5′-CTAAGTTTCAAAGCTGGGAGATGG-3′ وللخلف: 5′-GAATTCCTGAAAGGGCTCTG-3′; PRF1-للأمام: 5′-CCCAGTGGACACACAAGGTT-3′ والعكس: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-للأمام: 5′-CCCTTCCTGGTGCTGCTGCT-3′ وللخلف: 5′-CCTCCTTGTGTGTGTGTGG-3′; HSP90B1 للأمام: 5′-CCGAAGAAGAACCTGAAGAG-3′ وللخلف: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-للأمام: 5′-GGGGAGATGAAGTGTGAGGTGGG-3′ وللخلف: 5′-GCAATGTCGTGTGTGGGC-3′; GAPDH-للأمام: 5′-CAGGGCTGCTTTTAACTGTG-3′ وللخلف: 5′-GGGGGGAATCATATTGGAACA-3′.
اختبار البقعة الغربية
تم عزل البروتين الكلي، وتخفيفه في مخزن التحميل، وفصله بواسطة 10٪ SDS-PAGE، تلاها نقل إلى أغشية PVDF. تم حجب الأغشية وفحصها بأجسام مضادة أولية محددة، بما في ذلك مضاد TUBA1C (1:1000، ab222849)، مضاد HSP90B1 (1:1000، ab238126)، مضاد NCF4 (1:1000، 14648-1-AP)، مضاد PRF1 (1:1000، ab256453)، مضاد SLPI (1:1000، ab46763)، مضاد PLAU (1:1000، 17968-1-AP)، ومضاد GAPDH (1:5000، 10494-1-AP). تم تطبيق الأجسام المضادة الثانوية المتوافقة مع بيروكسيداز الفجل الحار (HRP) (1:2000، ab6721)، وتم رؤية الأشرطة باستخدام ركيزة كيميائية مضيئة معززة (ECL).
التحليل الإحصائي
تم إجراء التحليل الإحصائي باستخدام برنامج GraphPad Prism، حيث تم عرض البيانات كمتوسط ± SD. تم تقييم الفروق بين المجموعات باستخدام اختبار Student's t، واعتبرت قيمة P أقل من 0.05 ذات دلالة إحصائية.
النتائج
تحديد مستويات المسح المبكر
تم استخدام مجموعتين من البيانات، GSE78721 و GSE12288، لتحليل المعلوماتية الحيوية في هذه الدراسة. في عام GSE78721، تم تحديد ما مجموعه 2,266 جين DEG بين مرضى السكري من النوع الثاني والعينات الطبيعية، بما في ذلك 1,209 جين مرتفع و1,057 جين منخفض التنظيم (الشكل 1A). في عام GSE12288، تم التحقق من 924 جينة DEG بين مرضى ASCVD ومجموعة التسجيل، بما في ذلك 403 جينات تم التعبير عنها بشكل زائد و521 جينات تم تقليل تنظيمها (الشكل 1C). يتم تمثيل أفضل 50 نقطة DEG المحددة في كلتا مجموعتي البيانات في خرائط حرارية موضحة في الشكل 1B,D. من خلال تقاطع هاتين المجموعتين، تم تحديد 32 جينا C-DEG، تتكون من 20 جينا مرتفعا و12 جينا منخفضا (الشكل 2A,B).
إثراء GO وKEGG لوحدات C-DEGs
لتوضيح الوظائف البيولوجية والمسارات الرئيسية المرتبطة ب 32 C-DEG، أجريت تحليلات GO وKEGG. أعلى عشرة مصطلحات مرتبطة بالعمليات البيولوجية (BP)، والمكون الخلوي (CC)، والوظيفة الجزيئية (MF) بين C-DEGs معروضة في الشكل 3A. تشمل وظائف BP بشكل رئيسي تنظيم تنشيط البلازمينوجين، وتنظيم التحلل الليفي، والتنظيم الإيجابي لتمايز خلايا القلب، والتنظيم السلبي لارتباط البروتين، وتمايز البلاست. تتعلق وظائف CC بمركب إندوببتيداز من نوع السيرين، ومجمعات البروتين المشاركة في التصاق مصفوفة الخلية، والكروموسوم المكثف، وغشاء الحبيبات النوعية، وجسم PML. يشمل MF المكونات الهيكلية للهيكل الخلوي، ونشاط تنشيط أوكسيداز NADPH المولد للأكسيد الفائق، ونشاط الترانسفيراز داخل الجزيئات (الفوسفوترانسفيراز)، ونشاط إكسوببتيداز من نوع السيرين، وارتباط IgG (الشكل 3A). فيما يتعلق بتحليل KEGG، كانت C-DEGs متورطة بشكل أساسي في المسارات الحرجة، بما في ذلك التهاب عضلة القلب الفيروسي، اعتلال عضلة البطين الأيمن غير منظم النظم، سلاسل التكملة والتخثر، سرطان البروستاتا، اعتلال عضلة القلب التضخمي، اعتلال عضلة القلب المتوسع، الاستماتة المبرمجة، البلعمة، ومعالجة البروتينات في الشبكة الإندوبلازمية (الشكل 3B).
بناء شبكات مثبطات مضخة البروتون وفحص جينات المحور
من بين 32 C-DEGs، أظهرت ثلاثة جينات عدم وجود تفاعلات معروفة مع C-DEGs أخرى في قاعدة بيانات STRING، وبالتالي تم استبعادها من بناء شبكة PPI. تم استخدام منصة STRING لتحليل PPI ل29 وحدة C-DEG المتبقية، مما كشف عن شبكة تتكون من 29 عقدة و39 حافة، تم عرضها باستخدام Cytoscape (الشكل 4A). لاحقا، تم تحديد ثمانية منافذ C-DEG في المحور (HSP90B1، PLAU، SLPI، TOP3A، NCF4، PRF1، TUBA1C، وCS) بناء على درجة الاتصال الخاصة بها (الشكل 4B).
الاختلافات في تسرب الخلايا المناعية وارتباطها ب C-DEGs في المحور
ركز هذا التحليل حصريا على مجموعة بيانات T2DM (GSE78721) لدراسة التغيرات في البيئة الدقيقة المناعية في سياق T2DM وعلاقتها بجينات المحور. تم استخدام مخططات الكمان لعرض العلاقة بين مجموعة بيانات T2DM ومستويات التسلل ل 22 نوعا من الخلايا المناعية (الشكل 5A؛ التفاصيل في الجدول التكميلي 3). أظهر تحليل تسلل الخلايا المناعية نسبة أعلى من الخلايا الشجرية المنشطة في مجموعة T2DM مقارنة بالمجموعة الضابطة (P = 0.049)، بينما كانت نسبة الخلايا الغصنية المستقيمة أقل بشكل ملحوظ في مجموعة T2DM (P = 0.023). علاوة على ذلك، تم تصور العلاقة بين مستويات التعبير في ثمانية نقاط C-DEGs ومستويات التسلل في 22 نوعا مختلفا من الخلايا المناعية باستخدام خريطة حرارية (الشكل 5B). ومن الجدير بالذكر أن تعبير TOP3A أظهر ارتباطا إيجابيا قويا مع مستوى تسرب الخلايا التائية التنظيمية (Tregs) (P < 0.001)، بينما كان تعبير SLPI مرتبطا إيجابيا قويا بتغلغل خلايا غاما دلتا التائية (P < 0.001). وعلى العكس، أظهر تعبير NCF4 ارتباطا سلبيا قويا مع مستوى تسرب خلايا NK المنشطة (P < 0.001)، وكان تعبير PRF1 مرتبطا سلبيا قويا بمستوى تسرب الخلايا البلعمية M2 (P < 0.001)، وكان تعبير PLAU مرتبطا سلبا قويا بمستوى التسلل في خلايا B الساذجة (P < 0.001).
شبكة المرشحة المستهدفة للأدوية لمراكز C-DEGs
من بين ثمانية أهداف مركزية محددة C-DEGs، لم يتم إدراج CS وTOP3A كأهداف دوائية معروفة في قاعدة بيانات DGIdb، وبالتالي تم استبعادهما من تحليل شبكة الدواء المستهدف المرشح لاحقا. لتحديد الأدوية ذات الأدوار العلاجية المحتملة في T2DM وASCVD، تم تقديم ستة من C-DEGs Hub المتبقية إلى قاعدة بيانات DGIdb (التفاصيل في الجدول التكميلي 4). لاحقا، تم استخدام Cytoscape لبناء شبكة مرشحة للاستهداف الدوائي توضح الروابط بين C-DEGs في المركز والأدوية المستهدفة المرشحة (الشكل 6). تكونت هذه الشبكة من ستة مراكز C-DEGs، و136 دواء جزيئي، و137 حافة. تم تحديد 82، 5، 3، 4، 1، و42 دواء مستهدف مرشح ل TUBA1C وNCF4 وPRF1 وSLPI و HSP90B1 وPLAU على التوالي، مع تصنيف الغالبية كعوامل مضادة للأورم، ومضادات التهاب، ومضادة للتخثر.
التحقق من تعبير C-DEGs في المحور
نظرا لغياب CS وTOP3A كأهداف دوائية مرشحة في قاعدة بيانات DGIdb وكون وظائفهما البيولوجية أقل ارتباطا مباشرا بالاستراتيجيات العلاجية في سياق أبحاث T2DM وASCVD، ركزت الدراسة على ستة مراكز C-DEGs المتبقية (HSP90B1، PLAU، SLPI، NCF4، PRF1، وTUBA1C) للتحقق التجريبي. ولاستكشاف أدوار هذه الجينات المركزية C-DEGs، أجريت اختبارات qRT-PCR وWestern Blot لتقييم مستويات التعبير للجينات الأساسية عبر مجموعات مختلفة (الشكل 7 والشكل 8). تم رفع مستويات التعبير من TUBA1C وNCF4 وSLPI و HSP90B1 وPLAU بشكل ملحوظ لدى مرضى T2DM وASCVD مقارنة بالمجموعات الضابطة السليمة المقابلة، بينما تم تقليل تنظيم تعبير PRF1. تشير هذه النتائج إلى أن هذه الجينات الأساسية قد تلعب دورا مهما في تقدم مرضى السكري من النوع الثاني وASCVD.
توفر البيانات:مجموعات بيانات التعبير الجيني GSE78721 GSE12288 المستخدمة في تحليل المعلوماتية الحيوية في هذه الدراسة متاحة من قاعدة بيانات NCBI العامة GEO. البيانات الخام من جزء التحقق التجريبي الذي تم إنشاؤه في هذه الدراسة مقدمة في الملف التكميلي 1.
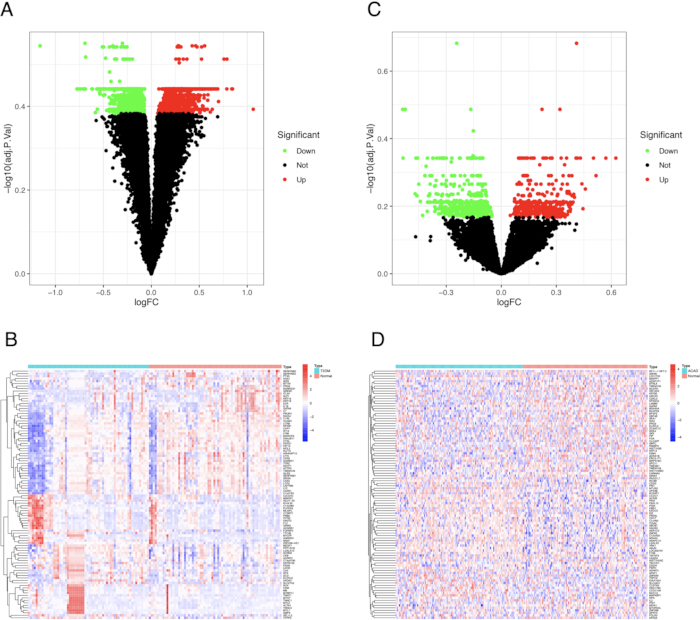
الشكل 1: تحديد مستويات DEGs في مجموعات البيانات GSE78721 و GSE12288. (A,C) مخططات البراكين لمستويات DEG في GSE78721 و GSE12288 على التوالي. |logFC|≥ 0.5 و P < 0.05 تم تحديد عتبة الفرز؛ تم وضع علامة على الجينات المرتفعة باللون الأحمر، والجينات التي تم تنظيمها باللون الأخضر. (ب، د) خرائط الحرارة لأفضل 50 DEG في GSE78721 و GSE12288 على التوالي. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
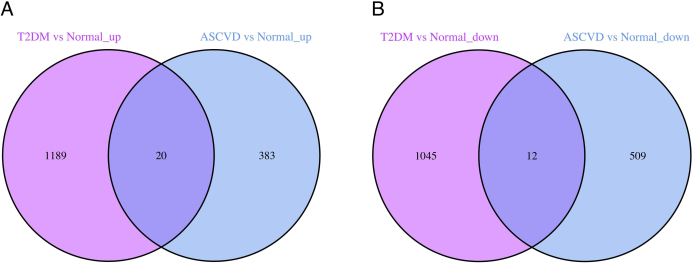
الشكل 2: مخطط فين لنماذج C-DEGs من مجموعتين بيانات. (أ) مخطط فين لمستويات C-DEGs المرتفعة من T2DM وASCVD في مجموعات بيانات GSE78721 و GSE12288. (ب) مخطط فين لمجموعات C-DEGs المخفضة من T2DM وASCVD في مجموعات بيانات GSE78721 و GSE12288. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
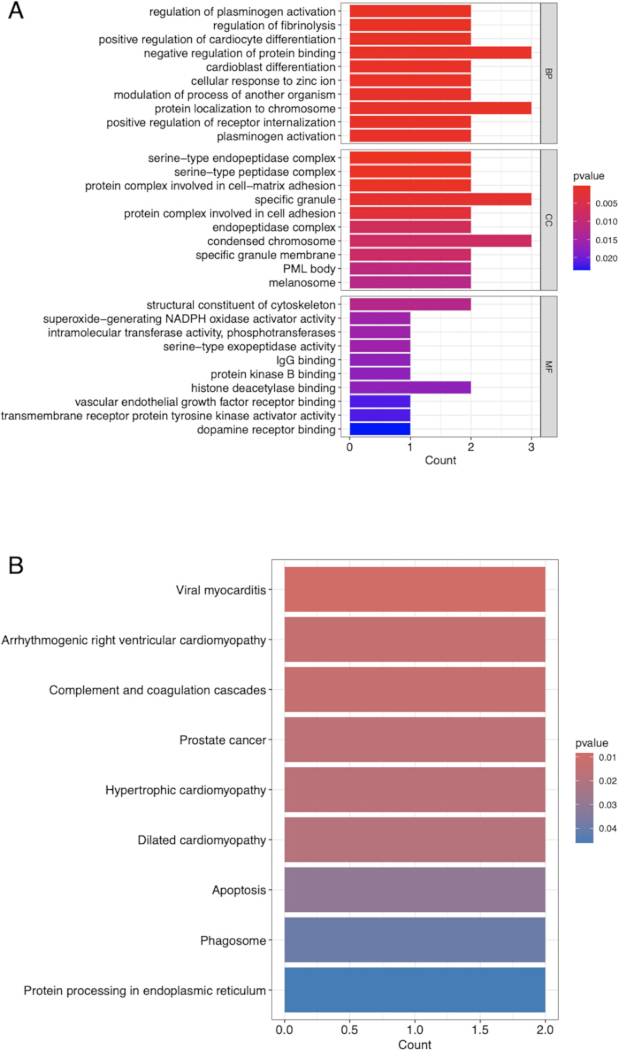
الشكل 3: تحليل إثراء الوظائف والمسارات لعناصر C-DEGs. رسوم بيانية شريطية لتحليلات إثراء GO (A) وKEGG (B). تشير الإحداثيات الرأسية إلى وصف عناصر GO المختلفة أو مسارات KEGG، والإحداثيات الأفقية إلى عدد C-DEGs المخصبة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
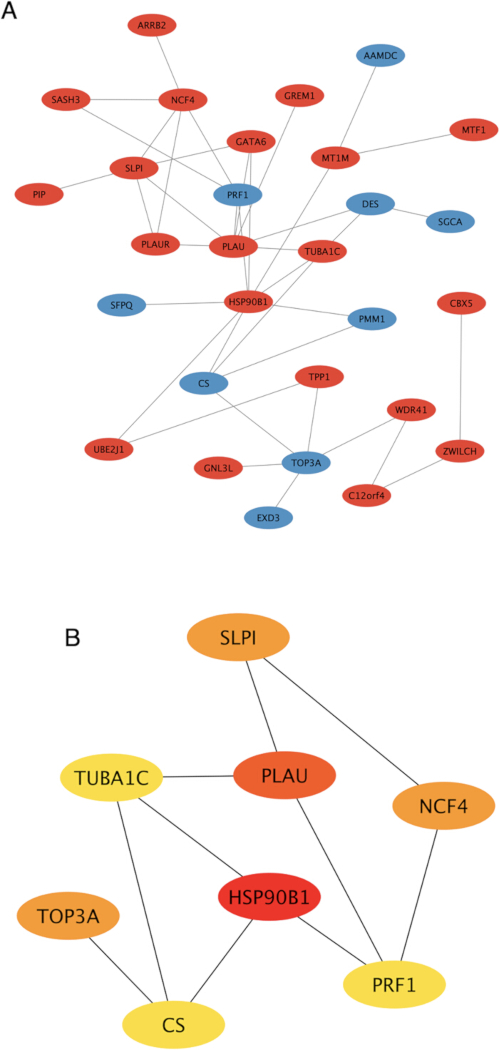
الشكل 4: فحص شبكات PPI وجينات المحور لمواد C-DEGs. (أ) شبكة PPI من C-DEGs. الأحمر والأزرق يمثلان C-DEGs المرتفعة والمنخفضة على التوالي. (ب) تم تحديد ثمانية جينات محور بين C-DEGs. تمثل العقد C-DEG، والحواف تمثل التفاعل بين C-DEGs. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
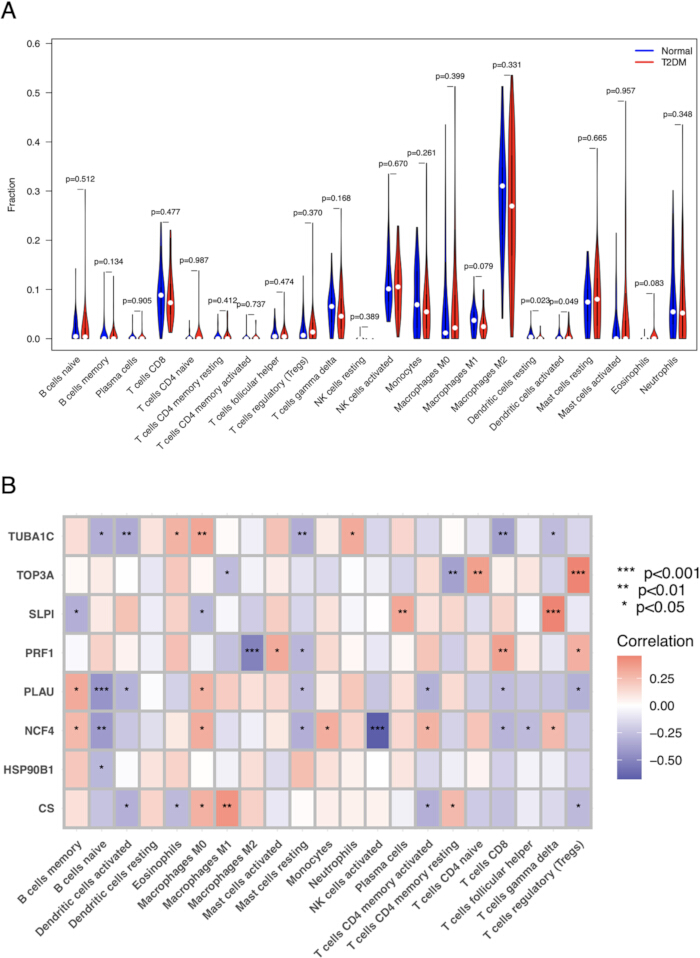
الشكل 5: تحليل تسرب الخلايا المناعية. (أ) الاختلافات في تسرب 22 نوعا من الخلايا المناعية بين مجموعة T2DM ومجموعة الضابطة. المحور الأفقي: أنواع الخلايا المناعية؛ المحور الرأسي: مستوى تسرب نسبي لخلايا المناعة. (ب) خريطة الحرارة الترابطية لتعبير 8 نقاط مركزية C-DEGs ومستويات التسلل ل 22 نوعا من الخلايا المناعية. المربعات الحمراء: ارتباط إيجابي؛ المربعات الزرقاء: ارتباط سلبي. الألوان الداكنة تشير إلى ارتباطات أقوى. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
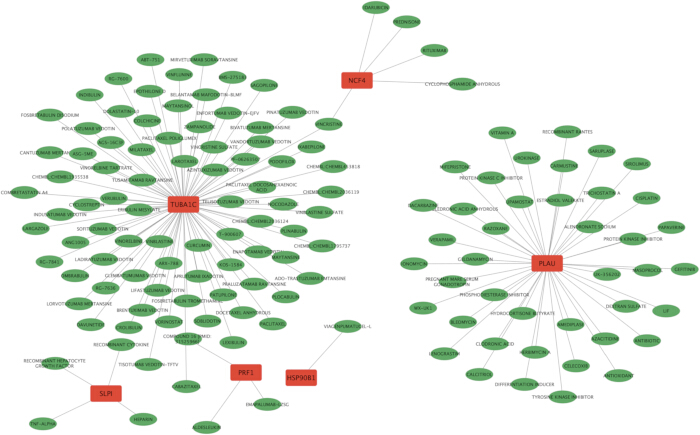
الشكل 6: شبكة مستهدفة للأدوية المرشحة لستة مراكز C-DEG. تمثل العقد الحمراء C-DEGs في المركز، والعقد الخضراء تمثل الأدوية المستهدفة المرشحة، والحواف بينها تمثل أزواج التفاعل. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
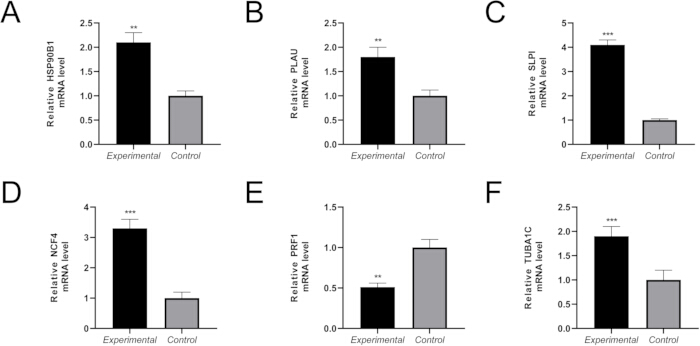
الشكل 7: التحقق من صحة التعبير الجيني الأساسي لدى المرضى المصابين ب T2DM وASCVD بواسطة qRT-PCR. تم اكتشاف مستويات تعبير mRNA لكل HSP90B1 (A)، PLAU (B)، SLPI (C)، NCF4 (D)، PRF1 (E)، وTUBA1C (F) بواسطة qRT-PCR. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
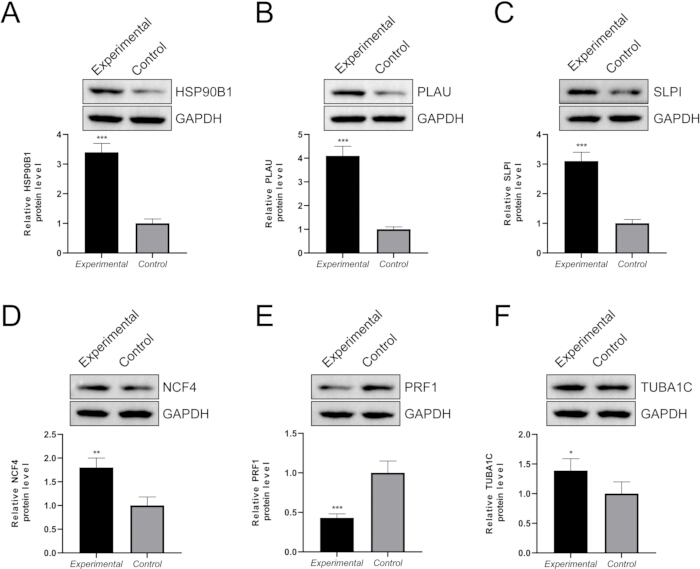
الشكل 8: التحقق من صحة التعبير الجيني الأساسي لدى مرضى T2DM وASCVD بواسطة Western Blot. تم اكتشاف مستويات تعبير البروتين HSP90B1 (A)، PLAU (B)، SLPI (C)، NCF4 (D)، PRF1 (E)، وTUBA1C (F) بواسطة اختبارات Western Blot. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
الجدول التكميلي 1. مصفوفة التعبير الجيني لمجموعة البيانات GSE78721، المستخدمة في تحليل النسخ النصي T2DM في هذه الدراسة. يرجى الضغط هنا لتحميل هذا الملف.
الجدول الإضافي 2. مصفوفة التعبير الجيني لمجموعة البيانات GSE12288، المستخدمة في تحليل النسخ النسوي لفيروس ASCVD في هذه الدراسة. يرجى الضغط هنا لتحميل هذا الملف.
الجدول التكميلي 3: تحليل تسرب الخلايا المناعية في مجموعة بيانات GSE78721. يرجى الضغط هنا لتحميل هذا الملف.
الجدول التكميلي 4: التفاعلات المرشحة بين الدواء والهدف لجينات المركز المشتركة المعبر عنها بشكل تفاضلي. يرجى الضغط هنا لتحميل هذا الملف.
الملف التكميلي 1: البيانات الخام من جزء التحقق التجريبي الذي تم إنشاؤه في هذه الدراسة. يرجى الضغط هنا لتحميل هذا الملف.
المناقشة
السكري من النوع الثاني ومرض ASCVD هما أمراض معقدة، مع أدلة ناشئة تشير إلى وجود ارتباط مهم بينهما. تعد مقاومة الأنسولين مؤشرا محوريا لمختلف اضطرابات الأيض القلبية الوعائية، بما في ذلك السكري من النوع الثاني (T2DM)، والتي تساهم مجتمعة في تطور ASCVD وقد تؤثر على توقعه 6,7. بالإضافة إلى ذلك، DM عامل دافع في تطور تصلب الشرايين20. يواجه الأفراد المصابون بمرض النوع الثاني من النوع الثاني خطرا متزايدا للإصابة ب CAD21، ومع ذلك لا تزال هناك تساؤلات حول الآليات الأساسية للأمراض المصاحبة. تهدف هذه الدراسة إلى استكشاف العلاقة والآليات التي تربط هذين المرضين، إلى جانب تحديد العلامات الحيوية المحتملة من خلال تحليل المعلوماتية الحيوية والتحقق التجريبي.
في هذه الدراسة، تم تحديد ما مجموعه 32 جينة C-DEGs بين T2DM وASCVD، تتكون من 20 جينا مرتفعا و12 جينا منخفضا. كشفت تحليلات GO وKEGG التخصيب أن هذه C-DEGs كانت غنية بشكل رئيسي في مسارات أيضية حرجة مرتبطة ارتباطا وثيقا بكل من CAD وT2DM 22,23. تم فحص ثمانية أجهزة C-DEG في المحور (HSP90B1، PLAU، SLPI، TOP3A، NCF4، PRF1، TUBA1C، وCS) عبر الحالتين. ومن الجدير بالذكر أن C-DEGs في المحور (TOP3A، SLPI، NCF4، PRF1، وPLAU) كانت مرتبطة بشكل كبير بمستويات تسرب الخلايا المناعية. تم ربط HSP90B1 بتقدم السرطان24 وقد يكون له أيضا ارتباط بمرض T2DM25. لقد ثبت أن PLAU يلعب دورا في منع الشيخوخة المبكرة للأوعية الدموية المرتبطة بالسكري من النوع الثاني26، وهو أمر حاسم في تطور اللويحات التصلب الشرايي، حيث يوفر رؤى حول مؤشرات الإنذار المبكر ويوضح الآليات الكامنة وراء تقدم مرض السرطانالكاسي 27. يزداد تعبير SLPI مع خلل الأيض التدريجي28 وقد تم تحديده كنوع C-DEG مرتبط بضعف تحمل الجلوكوز وT2DM29. لقد أثبت NCF4 روابط مع CAD30 ويساهم في تنظيم نشاط أوكسيداز NADPH وتنشيط الإنفلاماسومات31. نظرا للدور الرئيسي ل PRF1 في مراقبة وتنظيم المناعة32، فإنه يحمل إمكانات تشخيصية، حيث يميز بين احتشاء عضلة القلب وCAD33 المستقر. علاوة على ذلك، يعمل PRF1 كلاعب مناعي حيوي في مقاومة الأنسولين المرتبطة بالسمنة34. كما ارتبط TUBA1C بالسرطانات ويرتبط بتسرب المناعة داخل البيئة الدقيقة للورم35. تم تحديده كجين قابلية لأمراض القلبالتاجية 36. ومع ذلك، لا تزال العلاقة بين ASCVD وT2DM غير مستكشفة.
كشف تحليل KEGG عن تورط هذه الجينات المرشحة في مسارات مثل "شلالات التكميم والتخثر" و"معالجة البروتينات في الشبكة الإندوبلازمية". أكد التحقق التجريبي للجينات الرئيسية ضمن هذه المسارات، وبشكل خاص PLAU (بروتياز سيريني يشارك في التحلل الليفي والتخثر) و HSP90B1 (مرافق الشبكة الإندوبلازمية)، خلل تنظيمهما في نموذج T2DM لدينا. تضع هذه النتائج أبحاثنا ضمن إطار جزيئي محدد، مما يشير إلى أن اختلالات استجابة إجهاد الشبكة الإندوبلازمية ومسارات الانحلاط قد تكون جزءا لا يتجزأ من أمراض السكري، وتمتد إلى ما هو أبعد من العمليات الالتهابية المعترف بها على نطاق واسع.
وثقت أبحاث موسعة استجابات مناعية مختلة لدى مرضى السكري37. يلعب تنشيط الخلايا المناعية غير الطبيعي دورا محوريا في تقدم السكري من النوع الثاني38,39. كشف تحليل تسلل المناعة عن تغير كبير في حجرة الخلايا التغصنية في T2DM، يتميز بزيادة نسبة الخلايا الشجرية المنشطة وانخفاض نسبة الخلايا الشجرية المستراحة (الشكل 5A). يشير هذا إلى حالة من تعزيز ظهور المستضد وتنشيط المناعة في T2DM، مما قد يساهم في تلف التهابي مزمن في الأنسجة المستهدفة. علاوة على ذلك، تشير الارتباطات القوية التي لوحظت بين جينات المحور المحددة (مثل NCF4 مع خلايا NK المنشطة، PRF1 مع بلاعم M2) (الشكل 5B) إلى روابط ميكانيكية بين التعبير الجيني في الأنسجة الأيضية وتركيب البيئة الدقيقة المناعية المحلية، مما يحدد أهدافا جديدة للتدخلات المناعية المعدلة.
بالإضافة إلى ذلك، تم إجراء تحليل شبكة الدواء المستهدف للتنبؤ بالأهداف العلاجية المحتملة، والآليات الأساسية، والأدوية لمرض السكري من النوع الثاني ومرض السرطان المزمن. شملت هذه الشبكة المستهدفة للأدوية المرشحة ستة أقراص مركزية C-DEGs، و136 دواء جزيئيا، و137 حافة. أسفر التحليل عن 82، 5، 3، 4، 1، و42 دواء مستهدف مرشح ل TUBA1C وNCF4 وPRF1 وSLPI و HSP90B1 وPLAU على التوالي. تصنف غالبية هذه الأدوية كعوامل مضادة للأورم، ومضادات للالتهاب، ومضادة للتخثر. ومن الجدير بالذكر أن بعض الأدوية، بما في ذلك ريتوكسيماب، بريدنيزون، مضادات الأكسدة، فيراباميل، المضادات الحيوية، الكولشيسين، والهيبارين، أظهرت وظائف علاجية في كل من T2DM 15,40,41,42,43,44,45,46 وCAD 15,47,48,49,50, 51,52,53,54,55، مما يشير إلى تأثيراتها العلاجية المحتملة لدى مرضى السكري من النوع الثاني واضطراب القلق الجماعي. علاوة على ذلك، أظهرت عدة أدوية مثل أليندرونات، الصوديوم، الكالسيتريول، السيلوكسيب، ماسوبروكول، ميفيبريستون، والكركمين أن لها وظائف علاجية محددة في T2DM 56,57,58,59,60,61,62,63 ، وقد يكون ذلك مفيدا أيضا لمرض ASCVD. كما تم التحقق من صحة تعبير هذه ال المراكز C-DEGs في T2DM وASCVD.
لهذه الدراسة عدة قيود. أولا، كانت أحجام العينات السريرية ضمن تجربة التحقق غير كافية ويجب توسيعها. ثانيا، هناك حاجة لمزيد من البحث التجريبي لتوفير رؤى قيمة حول العلاقة بين T2DM وASCVD. سيشمل العمل المستقبلي التحقق من النتائج مع مجموعات سريرية أكبر وإجراء دراسات تجريبية أكثر شمولا لتوضيح الآليات الجزيئية والمسارات المرضية التي تربط هذين المرضين. في قسم التحقق التجريبي، تم تجميع عينات مرضى السكري من النوع الثاني ومرض ASCVD في "مجموعة تجريبية" واحدة للمقارنة مع مجموعة ضابطة سليمة. بينما سهل هذا التصميم التحقق من صحة التغيرات العامة في التعبير في C-DEGs الأساسية المحددة في الحالة المصاحبة، إلا أنه لا يميز ما إذا كانت هذه التغيرات الخاصة ب T2DM أو ASCVD أو مشتركة بين الاثنين. ينبغي أن تقارن الدراسات اللاحقة مجموعات مميزة من مرضى السكري من النوع الثاني، ومرضى ASCVD، والأفراد المصابين بمرض السكري من النوع الثاني المصاحب مع ASCVD لتحديد الأدوار المحددة لهذه الجينات في الأمراض الفردية بدقة أكبر مقارنة بالحالة المصاحبة. علاوة على ذلك، تم إجراء تحليل تسرب الخلايا المناعية حصريا على مجموعة بيانات T2DM (GSE78721) ولم يجرى بالتوازي مع مجموعة بيانات ASCVD (GSE12288). لذا، فإن الارتباطات المبلغ عنها بين C-DEGs في المحور ومستويات تسلل الخلايا المناعية (مثل TOP3A مع Tregs، SLPI مع خلايا T دلتا غاما) تعكس فقط أدوارها المحتملة في تعديل المناعة ضمن السياق المرضي ل T2DM. هناك قيود أخرى وهي غياب التحقق الوظيفي للتفاعلات المتوقعة بين الدواء والهدف. يجب أن تتضمن التحقيقات المستقبلية محاكاة الالتحام الجزيئي لتقييم الألفة المرتبطة، إلى جانب تجارب في الجسم الحي باستخدام نماذج حيوانية لتقييم الفعالية العلاجية لهذه الأدوية المرشحة.
في الختام، حدد هذا التحليل المتكامل للمعلوماتية الحيوية، المدعوم بالتحقق التجريبي الأولي، عدة جينات ومسارات محورية مشتركة بين T2DM وASCVD، ويقترح مرشحين محتملين للأدوية يستهدفون هذه الجينات. تقدم هذه النتائج فرضيات جديدة وأهدافا مرشحة لمزيد من الاستكشاف الميكانيكي والعلاجي للتفاعل المعقد بين T2DM وASCVD.
الإفصاحات
يعلن المؤلفون عدم وجود مصالح متنافسة.
شكر وتقدير
يشكر المؤلفون بكل امتنان الدعم المالي الذي قدمه برنامج مؤسسة نينغشيا للعلوم الطبيعية (رقم المنحة 2023AAC03498) ومشروع الابتكار العلمي والتكنولوجيا في ينتشوان (المنحة رقم 2024SF005). كما يشكر المؤلفون جميع المشاركين والباحثين الذين جعلت مساهماتهم هذه الدراسة ممكنة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
المراجع
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.