يوفر هذا البروتوكول طريقة موحدة لعزل وإثراء الخلايا العضلية الأولية من عضلات الفئران العظمية البالغة وحديثي الولادة من خلال تفكك الأنسجة، والترشيح المتسلسل، والطلاء المسبق، وتحديد ظروف الزرعة، مما يمكن من إنشاء وصيانة مزارع الخلايا العضلية المشتقة من الأقمار الصناعية للتطبيقات التجريبية لاحقا.
مقالة منهجية
عزل خلايا القمر الصناعي العضلي الهيكلي لدراسات تكوين العضلات في المختبر
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يعتمد تجديد ونمو العضلات العظمية على الخلايا التابعة، وهي الخلايا الجذعية المقيمة في نسيج العضلة. حاليا، تعمل هذه الخلايا كنموذج في المختبر الذي يمثل العمليات الطبيعية العضلية بدقة. ومع ذلك، فإن عزل الخلايا الصناعية يمثل تحديا تقنيا لأنها موجودة بأعداد صغيرة فقط داخل العضلات العظمية والطبيعة غير المتجانسة عادة لمجموعات الخلايا المعزولة. في هذه الدراسة، نصف طريقة موحدة لعزل وإثراء الخلايا العضلية الأولية من العضلات الهيكلية لكل من الفئران البالغة وحديثي الولادة. يوضح الإجراء تشريح العضلات، والتفكك الإنزيمي، والترشيح المتسلسل، وخطوات الطلاء المسبق للحد من الخلايا غير العضلية، وشروط الزراعة المحددة لإنشاء مزارع الخلايا العضلية المشتقة من خلايا الأقمار الصناعية. يوفر البروتوكول إرشادات عملية حول التوقيت، والتعامل، والخطوات الحاسمة لتأسيس ثقافة ناجحة. يمكن استخدام الخلايا العضلية الأولية المولدة باستخدام هذا البروتوكول في مجموعة متنوعة من التطبيقات اللاحقة، بما في ذلك دراسات تكوين العضلات، والتحليل الوظيفي، والتلاعب الجيني، وتصوير الخلايا الحية، أو اختبار المخدرات. تندمج الخلايا وتنضج بشكل موثوق، مما يجعلها مناسبة جدا لدراسة اندماج الخلايا العضلية، وتطور العضلات، وآليات التجدد لاستعادة وظيفة العضلات الهيكلية، بالإضافة إلى الأيض.
المقدمة
تعتمد قدرة العضلة العظمية على التجدد بعد أي إهانة لسلامتها بشكل أساسي على مجموعة متخصصة من الخلايا الأولية العضلية، المعروفة بخلايا الأقمار الصناعية (SCs)، التي سميت نسبة إلى موقعها الصناعي على طول الألياف العضلية. تتركز تحت طبقة ألياف العضلات، المرتبطة بألياف العضلات متعددة النوى 1,2,3. تتميز البكرات الصلبة بتعبير بروتين الصندوق المزدوج Pax7، الذي يحفظ عبر عدة أنواع، بما في ذلك الإنسان، والفأر، والقرد، والخنزير. Pax7، الذي تم تحديده كأول علامة قابلة للكشف للكائنات الصلبة في كل من الحالة السكونية والنشطة، ضروري لتطور وبقاء SCs4. في الظروف الطبيعية، تبقى الخلايا الصلبة في حالة سكونية (مرحلة G0 من دورة الخلية)، وتتميز بنشاط أيضي منخفض وعدم نشاط النسخ 5,6. عند إصابة العضلات أو الإجهاد الميكانيكي، تنشط، تستأنف دورة الخلية، تتوسع في الأعداد، وتتمايز لتساهم في ألياف عضلية جديدة أو تصلح الألياف التالفة 7,8,9. خلال هذه العملية، يجب أن تخضع مجموعة فرعية من الخلايا الجذعية للتجديد الذاتي، والعودة إلى حالة السكون (Pax7⁺) للحفاظ على سلامة تجمع الخلايا الجذعية على المدى الطويل. يحدث التجدد الذاتي إما من خلال الانقسام غير المتماثل، حيث تحتفظ إحدى الخلية الابنة بخصائص جذعية بينما تصبح الأخرى سلفا ميوجينيا ملتزما بها، أو من خلال الانقسام المتماثل، حيث تحتفظ كلتا الخلية الابنة بهوية جذعية أو تتمايز، حسب السياق الفسيولوجي والتخصصي10،11،12.
تلعب الخلايا الهيكلية العظمية دورا حيويا في تجديد العضلات، مما يجعلها محورا رئيسيا في بيولوجيا العضلات العظمية، والطب التجديدي، وأبحاث ضمور العضلات. فهم كيفية تصرف هذه الخلايا ووظائفها لا يسلط الضوء فقط على العمليات الأساسية لإصلاح العضلات، بل يمهد الطريق أيضا لتطوير علاجات لعلاج حالات هلال العضلات وتعزيز التجدد.
يعد عزل الخلايا الجزيئية عن أنسجة العضلات خطوة حاسمة في الدراسات المختبرية ، حيث يمكن من دراسة خصائصها الجزيئية، وإمكانات التكاثر، ومسارات التمايز، واستجاباتها للمحفزات المختلفة. ومع ذلك، تواجه هذه العملية عدة تحديات تقنية بسبب تركيب العضلة المعقد، وقلة عدد خلايا القمر الصناعي مقارنة بأنواع الخلايا الأخرى، والحاجة للحفاظ على قدرتها على البقاء وجذعها أثناء العزل.
حاليا، تستخدم ثلاث تقنيات رئيسية لعزل الخلايا السطحية: طريقة الطلاء المسبق، وفرز الخلايا المنشطة بالفلورة (FACS)، وفرز الخلايا المنشطة مغناطيسيا (MACS). كل طريقة تقدم مزايا وحدود مميزة من حيث النقاء، والإنتاجية، واستمرارية الخلايا، والحفاظ على SCs.
تستفيد طريقة الطلاء المسبق من خصائص اللصق التفاضلي للخلايا المشتقة من العضلات، حيث تعد الخلايا الصلصية من بين الأقل التصاقات. بعد هضم العضلة العظمية إنزيميا، يتم طلاء التعليق الخلوي غير المتجانس الناتج على صفائح زراعة عادة مغطاة بالكولاجين النوع الأول. بعد الحضانة لمدة 1-24 ساعة (حسب البروتوكول) عند 37°C، يتم جمع الخلايا غير الملتصقة ونقلها إلى صفيحة مغطاة بماتريغيل لمزيد من الزراعة 13,14,15,16. عادة ما تشمل المجموعة الناتجة كلا من الخلايا الكيميائية والأرومات الليفية بالإضافة إلى عدد قليل من الخلايا الدهنية والخلايا البطانية17,18. تكرار عملية الطلاء المسبق كل 24-48 ساعة لمدة تصل إلى أسبوع للفئران المعزولة من الفئران البالغة وحتى أسبوعين للمواليد الجدد يمكن أن يحسن نقاء المجموعة. على الرغم من أن هذه الطريقة فعالة من حيث التكلفة وبسيطة تقنيا، إلا أنها تتطلب جهدا كبيرا وغالبا ما تنتج مزارعا ذات تركيب متغير. طريقة الطلاء المسبق مناسبة للمختبرات التي لا تحتوي على FACS أو MACS، حيث توفر طريقة بسيطة لإثراء الخلايا الصناعية مع الحفاظ على قابلية العيش والخصائص الشبيهة بالجذع. لذلك، ينصح عموما بدمج هذا النهج مع طرق تنقية إضافية لتعزيز نقاء الخلايا بشكل عام. في البروتوكول الحالي، قمنا بتحسين خطوة الطلاء المسبق باستخدام صفائح مغطاة بالكولاجين وضبط التوقيت حسب النموذج. هذا الالتصاق التفاضلي يسرع إزالة الأرومات الليفية، مما يقلل فترة ما قبل الطلاء ويستخدم عوامل النمو، ويقلل من وقت التعامل مع الخلايا وإجهاد الخلايا أثناء العزل.
تعد FACS طريقة شائعة الاستخدام لعزل خلايا الأقمار الصناعية بناء على تعبير علامات سطحية محددة (α7-إنتغرين، CD34، CD29، β1-إنتغرين، CXCR4)، مما يتيح نقاء وخصوصية عالية19,20. ومع ذلك، غالبا ما يكون الأمر تحديا بسبب التعقيد التقني، وارتفاع تكلفة الأجسام المضادة، والحاجة إلى معدات متخصصة. علاوة على ذلك، فإن الضغط الميكانيكي والكيميائي الحيوي المفروض أثناء الفرز قد يؤثر سلبا على بقاء الخلية. قد يؤدي الحاجة إلى توليد تعليق خلية واحدة إلى فقدان خلوي كبير، بينما الاعتماد على علامات فلورية محددة قد يؤدي إلى تمثيل غير كامل لتباين خلايا الأقمار الصناعية. بالإضافة إلى ذلك، فإن الهضم الإنزيمي، الذي يستخدم لتفكيك الخلايا، لديه القدرة على تحلل المستضدات السطحية الحرجة، مما يؤثر على التحديد الدقيق والعزل أيضا، وقد يعيق أيضا وظيفة الخلايا العضلية21,22. يعد FACS مناسبا لعزل مجموعات سكانية نقية للغاية خلال فترة قصيرة، خاصة عندما تكون هناك حاجة إلى دقة ظاهرية دقيقة. ومع ذلك، فإن هذه الطريقة أقل ملاءمة عند الحفاظ على خلايا سليمة وقابلة للحياة، وذلك بسبب الضغوط الميكانيكية والكيميائية الحيوية التي تفرضها أثناء الفرز، أو للمختبرات التي تفتقر إلى المعدات المتخصصة.
أما MACS، فهي تقنية تستخدم لعزل الخلايا الصناعية عن طريق ربط الخرزات المغناطيسية المرتبطة بالأجسام المضادة ضد علامات سطحية محددة للأرومات الليفية وخلايا المناعة العامة على أسطحها ثم فصلها عن مجموعات الخلايا غير المرغوب فيها باستخدام مجال مغناطيسي. إخراج الانتقاء السلبي من الطور الثابت هو مجموعة خلايا الأقمار الصناعية محل الاهتمام. يتيح نظام MACS إثراء خلايا الأقمار الصناعية بكفاءة عالية النقاء وقابلية التوسع نسبيا، مع الحاجة إلى معدات متخصصة أقل وخبرة تقنية أقل مقارنة بنظام FACS. علاوة على ذلك، تحافظ عملية الفصل المغناطيسي اللطيفة على سلامة الخلية، مما يجعلها مناسبة للتطبيقات اللاحقة مثل زراعة الخلايا، وتحليل التعبير الجيني، ودراسات الزراعة. ومع ذلك، فإن نظام MACS محدود بانخفاض النقاء عندما تكون هناك حاجة لعدة علامات، وإمكانية ارتباط غير محدد أو انتقال بالخرز، ونقص البيانات الكمية عن تعبير العلامة 23,24,25.
على الرغم من توفر بروتوكولات لعزل خلايا العضلات الهيكلية، لا يزال الحصول على الزراعة الأولية القابلة للتكرار وذات التركيب الموحدة تحديا، خاصة بسبب التقلبات التطورية والخاصة بالأنسجة. تم وصف عزل العضلات القصيرة عن عضلات حديثي الولادة بشكل أقل تفصيلا مقارنة بالعضلات البالغة، مع بروتوكولات منشورة أقل نسبيا، والتي تتطلب العديد منها تحسينا إضافيا حسب الظروف التقنية والغرض التجريبي 26,27,28. غالبا ما يكون من الضروري تعديل المعايير، بما في ذلك تركيز الإنزيمات، ومدة الهضم، وظروف الزراعة، في مراحل تطور مختلفة - خاصة عند حديثي الولادة - لتحقيق أقصى إنتاجية وقابلية للبقاء ونقاء الخلايا المعزولة. في هذا المقال، نعرض بروتوكولا محسنا لعزل الخلايا الفضائية عن عضلات الهيكل العظمي للفئران البالغة وحديثي الولادة (الأيام بعد الولادة 6-14، P6-P14)، يجمع بين الطلاء المسبق وفرز MACS مع تعديلات على توقيت الطلاء المسبق وتركيب الوسط. يوفر هذا البروتوكول مجموعة خلايا قابلة للتكرار عبر مراحل النمو، مع وجود خلايا معزولة تظهر نقاء وقابلية عالية للبقاء. تشير الصبغات المناعية إلى أن نسبة خلايا Pax7+ عادة ما تتجاوز 97٪. علاوة على ذلك، تظهر هذه الخلايا العضلية إمكانات تمايز قوية، حيث تشكل أنابيب العضلة متعددة النوى بكفاءة عند استبدال وسط النمو بوسط تمايز. يمكن ملاحظة أنابيب العضلة المتمايزة باستخدام مجهر التباين الطوري أو التحقق من خلال التلوين المناعي لسلسلة الميوسين الثقيلة (MHC)، وهي علامة تشير إلى نضج ألياف العضلات.
البروتوكول
تم استخدام الفئران الذكور البالغة (عمرها 3 أشهر) من النمط الجيني C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J، بالإضافة إلى الفئران الذكور والإناث حديثي الولادة (الأيام بعد الولادة 6-14، P6-P14) من النمط الجيني C57BL/6J x flox/MK5/Flox، في هذه الدراسة. تم تربية الفئران وتربيتها في ظروف خالية من الممرضات داخل منشأة الحيوانات التابعة لمعهد نينسكي لعلم الأحياء التجريبي، PAS. خلال التجارب، تم توفير نظام غذائي تقليدي للفئران للقوارض. تم إجراء رعاية الحيوانات وإعدامه وفقا لتوجيهات مجلس الجمعيات الأوروبية التي اعتمدها بولندا (قانون 15 يناير 2015 بشأن استخدام الحيوانات في الأبحاث). وبما أن جميع الدراسات استخدمت أنسجة من الحيوانات دون التسبب في المعاناة، لم يكن من الضروري الحصول على موافقة لجنة أخلاقيات. تم إجراء الإجراءات تحت إشراف وتفويض مدير معهد نينسكي لعلم الأحياء التجريبي. تم منح الموافقات الداخلية التالية: 410P/2021/IBD و487W/2022/IBD. في التجارب، تم تحليل عضلات الأطراف الخلفية التالية في الحيوانات البالغة: الجهاز الهضمي، العضلة العضلية العضلية، العضلة الطويلة (extensor digitorum longus)، وتيبياليس الأمامي. في المولود الجديد، تم فحص عضلات الطرف الخلفي والأطراف الأمامية في عضلة الترايسبس بالكامل.
موضح الشكل 1 نظرة عامة تخطيطية لإجراء عزل وتنقية الخلايا العضلية الأولية من عضلات الأطراف الخلفية للفئران.
يتم توفير معلومات حول الكواشف والمعدات المستخدمة في هذه الدراسة في جدول المواد.
1. تشريح العضلات
- قم بقتل الفأر وفقا للإرشادات المعتمدة من الاتحاد الدولي للنقابات (IACUC) التي وضعتها المؤسسة.
- قم بتشريح عضلات الطرف الخلفي خارج خزانة السلامة البيولوجية. رش الأطراف الخلفية بنسبة 70٪ إيثانول وضع الفأر في وضع الاستلقاء.
ملاحظة: لا تتطلب تقنية التعقيم لهذه الخطوة، باستثناء استخدام أدوات تشريح معقم و70٪ إيثانول لتطهير السطح. - جمع العضلات
- قم بإزالة الجلد من كلا الطرفين الخلفيتين بعناية باستخدام مقص معقم لكشف العضلات الأساسية. باستخدام مقص ومقطط معقم، قم بعمل شق في الجلد الظهري وقم بتقشيره بلطف لتكشف عضلات الأطراف الخلفية بالكامل. قم بإزالة أي نسيج دهني أو أوتار ظاهرة لضمان التحضير النظيف.
- قم بتقشير اللفافة المحيطة ببطن العضلة بحذر لضمان عزل أكثر تجانسا وتقليل التلوث. استمر في عزل الأنسجة واجمع العضلات من أحد الأطراف الخلفية. نقل العضلات فورا إلى صفيحة زراعة تحتوي على محلول ملحي مخزن الفوسفات 1x مع 1٪ بنسلين وستربتوميسين (PBS + P/S). كرر عملية التشريح للطرف الخلفي المقابل وضع العضلات في صفيحة زراعة ثانية تحتوي على PBS + P/S.
ملاحظة: الفئة العمرية المثلى للفئران حديثة الولادة هي من اليوم السادس بعد الولادة (P6) إلى اليوم الرابع عشر بعد الولادة (P14). تحت P6، يكون عزل العضلات أقل دقة وقد يؤدي إلى تلوث من الأنسجة المحيطة، مما يقلل من تجانس الزرعة. بدءا من P6، يصبح عزل بطون العضلات - من الأصل إلى أوتار الإدخال - أنظف وبالتالي يحسن جودة الأوتار الخارجية بشكل عام. بالنسبة للفئران حديثة الولادة، قد تتجمع عضلات عدة حيوانات في صفيحة واحدة. من هذه النقطة فصاعدا، يجب تنفيذ جميع الإجراءات تحت ظروف معقمة في خزانة السلامة البيولوجية لتجنب التلوث، وفي درجة حرارة الغرفة (RT) إذا لم يتم تحديد خلاف ذلك.
- رش الجزء الخارجي من اللوحة بنسبة 70٪ إيثانول قبل نقله إلى خزانة أمان حيوي معقمة. باستخدام زوج ثان من الملقط المعقم المستخدم، انقل العضلات من صفيحة الزراعة إلى البئر الأول من صفيحة ذات 6 آبار تحتوي على PBS + P/S، ثم أضف 2-3 قطرات من البيتادين (100 ملغ/مل) لتطهير الأنسجة. بعد هز خفيف لأقل من 10 ثوان، انقل العضلات بسرعة عبر البئر الثاني والثالث الذي يحتوي على PBS + P/S طازج لشطف البيتادين جيدا وإزالة أي شعر أو نسيج ضام أو بقايا أخرى.
ملاحظة: يجب عدم تعرض العضلات للبيتادين لفترة طويلة، لأنه قد يكون ساما للخلايا.
2. هضم العضلات
- باستخدام زوج ثان من الملقط المعقم بنظام العقم، انقل العضلات المغسولة إلى أنبوبين بحجم 1.5 مل (أنبوب واحد لكل مجموعة عضلية في الطرف الخلفي). قم بتقطيع الأنسجة بدقة باستخدام مقص معقم حتى تتقلص العضلة إلى شظايا صغيرة وموحدة بحجم يقارب 1-2 مم، لضمان التعرض المتساو أثناء الهضم الإنزيمي اللاحق.
- هضم الكولاجيناز
- انقل العضلات المفرومة إلى أنابيب تفكك الأنسجة التي تحتوي على 0.2٪ كولاجناز في وسط النسر المعدل (DMEM) من دولبيكو المصفاة بفلتر مسام بحجم 0.2 ميكرومتر. استخدم أنبوب تفكك واحد لكل مجموعة عضلية في الطرف الخلفي، مع الحفاظ على نسبة 500 ملغ من الأنسجة لكل 3 مل من محلول الكولاجناز.
ملاحظة: الكولاجناز هو إنزيم محلل للبروتيولوجيا يمكن أن يسبب تهيج الجلد والعين وتحسيس الجهاز التنفسي إذا تم استنشاقه. تعامل مع المسحوق في غطاء بخار كيميائي وارتد معدات الحماية الشخصية المناسبة.
التقطيع الدقيق للأنسجة العضلية في هذه المرحلة أمر بالغ الأهمية لتحقيق العائد الأمثل للعضلات العضلية. ومع ذلك، إذا تجاوزت الكتلة النسيجية الكلية 500 ملغ، زد كمية الكولاجناز بشكل متناسب، لأن الإفراط في الأنسجة قد يؤثر على كفاءة الهضم الإنزيمي عند تركيز الإنزيم الموضح أدناه. - حضن العينات لمدة 30 دقيقة عند 37 درجة مئوية لبدء الهضم الإنزيمي.
- انقل العضلات المفرومة إلى أنابيب تفكك الأنسجة التي تحتوي على 0.2٪ كولاجناز في وسط النسر المعدل (DMEM) من دولبيكو المصفاة بفلتر مسام بحجم 0.2 ميكرومتر. استخدم أنبوب تفكك واحد لكل مجموعة عضلية في الطرف الخلفي، مع الحفاظ على نسبة 500 ملغ من الأنسجة لكل 3 مل من محلول الكولاجناز.
- إجراء تفكك الأنسجة باستخدام مفكك ميكانيكي للأنسجة باستخدام برنامج m_muscle_01 (يشير إلى برنامج محدد ومحدد مسبقا ومحسن على المفكك يتكون من تحريك ميكانيكي مضبوط) مصمم لتسهيل الهضم الإنزيمي مع الحفاظ على حيوية الخلية. طبق البرنامج مرتين لتعزيز الاضطراب الميكانيكي للأنسجة.
- إذا لم يكن هناك مفكك للأنسجة، مرر العضلات المفرومة عبر إبرة حقنة 20 جالون عدة مرات حتى يتم الحصول على تعليق متجانس بدون شظايا كبيرة من الأنسجة.
بدلا من ذلك، نقل العضلة المفرومة إلى أنبوب مخروطي بحجم 15 مل يحتوي على كولاجناز 0.2٪ بدلا من ذلك.
- إذا لم يكن هناك مفكك للأنسجة، مرر العضلات المفرومة عبر إبرة حقنة 20 جالون عدة مرات حتى يتم الحصول على تعليق متجانس بدون شظايا كبيرة من الأنسجة.
- حضن العينات مرة أخرى لمدة 30 دقيقة إضافية عند 37 درجة مئوية لإكمال عملية الهضم.
- كرر الخطوة 2.3 مرة أخرى لضمان التفكك الميكانيكي الكامل للأنسجة المتبقية.
ملاحظة: راقب هضم العضلات بعناية في هذه المرحلة. يجب أن يكون النسيج مفككا تقريبا بالكامل، مع بقاء أقل شظايا مرئية، ويجب أن يبدو وسط الهضم عكرا. الحضانة المفرطة تضر الخلايا.
3. ترشيح الخلايا
- ضع مصفاة خلية بحجم 100 ميكرومتر فوق أنبوب مخروطي بحجم 50 مل. بلل المصفاة مسبقا ب 1 مل من وسط معادل معادل مسبقا (حتى 37 درجة مئوية) يحتوي على DMEM عالي الجلوكوز مع 10٪ مصل أبقار جنيني (FBS) و1٪ P/S.
- اسكب تعليق العضلات المهضوم فوق مصفاة 100 ميكرومتر المبللة. اشطف المصفاة بمقدار 1 مل إضافي من الحمض النووي لإزالة بقايا الأنسجة.
- في أنبوب مخروطي جديد بسعة 50 مل، ضع مصفاة خلية بسعة 70 ميكرومتر ورطبها مسبقا ب 1 مل من وسط NM. مرر المرشح من مصفاة 100 ميكرومتر عبر مصفاة مبللة بحجم 70 ميكرومتر لإزالة الخلايا الأكبر المتسللة، بما في ذلك البلاعميات. شطف مصفاة 70 ميكرومتر ب 1 مل من الم النانومي لاستعادة أي خلايا متبقية.
- في أنبوب مخروطي جديد بسعة 50 مل، ضع مصفاة خلية بقطر 40 ميكرومتر ومرر خليط الخلية عبر مصفاة 40 ميكرومتر المبللة مسبقا. شطف مصفاة 40 ميكرومتر ب 1 مل من الم النونومي لاستعادة أي خلايا متبقية.
- جهز مصفاة خلية بحجم 30 ميكرومتر على أنبوب مخروطي بحجم 15 مل وترطبها مسبقا ب 1 مل من المتر النانوم. مرر الفلترة من مصفاة 40 ميكرومتر عبر مصفاة 30 ميكرومتر المبللة مسبقا لتحسين تعليق الخلية. اغسل مصفاة 30 ميكرومتر ب 1 مل من الم النانومتر لتعظيم استرداد الخلية.
- قم بالطرد المركزي لتعليق الخلية المجمعة عند 300 × جرام لمدة 15 دقيقة عند RT. تأكد من وجود حبيبة خلايا بيضاء مرئية في أسفل الأنبوب. عند العمل تحت خزانة أمان حيوي معقمة، قم بإزالة وتخلص من الطبقة الفوقية (وسط الهضم).
ملاحظة: بعد الطرد المركزي، يمكن إعادة تعليق الحبيبات الخلوية في وسط تكاثر الخلايا العضلية (MPM) وإما الانتقال مباشرة إلى القسم 5 لإثراء الخلايا الأو، اختياريا، خضوعها لفرز الخلايا المغناطيسي (MACS، الموضح أدناه) لزيادة نقاء مجموعة الخلايا العضلية.
4. (اختياري) فرز الخلايا المنشطة مغناطيسيا
- أعد تعليق الحبيبات الخلوية التي تم الحصول عليها في الخطوة 3.6 في مخزن فرز MACS المحضر حديثا يتكون من 1x PBS (pH 7.2)، 0.5٪ FBS، و2 mM EDTA. استخدم 80 ميكرولتر من المحلول المؤقت لكل جرام من النسيج الأصلي.
ملاحظة: حافظ على مخزن فرز MACS عند 2-8 درجات مئوية طوال الإجراء. - أضف 20 ميكرولتر من مادة الوسم المغناطيسي لعزل الخلايا الصناعية لكل ما يصل إلى 1 جرام من الأنسجة.
ملاحظة: للعينات التي تقل عن 1 جرام، استخدم نفس حجم الكواشف كما هو موضح ل 1 جرام. بالنسبة للعينات التي تزيد عن 1 جرام، قم بقياس جميع أحجام الكواشف بشكل متناسب (مثلا، لجرمان 2 من الأنسجة، استخدم ضعف حجم الكاشف). - اخلط العينة بلطف لضمان تجانس العلامات واحتضن العينة لمدة 15 دقيقة عند 2-8 درجات مئوية على الثلج.
- بعد الحضانة، قم بضبط الحجم الكلي إلى 500 ميكرولتر باستخدام مخزن فرز MACS للعينات المستمدة من ما يصل إلى 5 جرام من الأنسجة. للحصول على كميات أكبر من الأنسجة، قسم التعليق بالتساوي إلى عدة أنابيب للحفاظ على كفاءة الفصل المثلى.
- الفصل المغناطيسي وجمع خلايا الأقمار الصناعية
ملاحظة: قم بإجراء الفصل المغناطيسي باستخدام نظام فصل الخلايا المغناطيسية وفقا لتعليمات الشركة المصنعة.- ضع عمود فصل في المجال المغناطيسي للفاصل المغناطيسي. اغسل عمود الفصل بسعة 3 مل من مخزن الفرز لتوازنه قبل تطبيق العينة.
- طبق تعليق الخلية الموسوم على العمود واجمع الجزء المتدفق الذي يحتوي على السكان المغنيين بالخلايا الفضائية.
- اغسل العمود بجزأين متتاليين بحجم 1 مل من مخزن الفرز. أضف كل أليكوت فقط بعد أن يفرغ خزان العمود. اجمع الخلايا التي تمر وادمجها مع المادة المشهولة من الخطوة 4.5.3.
- قم بجهاز الطرد المركزي لتعليق الخلية المدمج عند 300 × جرام عند RT لمدة 10 دقائق لدفع الخلايا المعزولة في الميكروفون.
5. تنقية العضلات العضلية (خطوة ما قبل الطلاء المعدني)
- حضر أطباقا مغطاة بالكولاجين.
- يتم تخفيف كولاجين الفئران من النوع الأول في حمض الخليك بسعة 20 ملليمول (مذاب في ماء مقطر معقم) إلى تركيز عمل 50 ميكروغرام/مل وإضافته إلى وعاء الاستزراع. احتضن التمارين عند RT لمدة ساعة واحدة.
ملاحظة: حوالي 5 مل من الكولاجين بقوة 50 ميكروغرام/مل مطلوبة لتغطية صفيحة بحجم 100 مم بمساحة سطحية تبلغ ≈80 سممربع. - استنشق المحلول بعناية من اللوحات.
- اشطف الألواح جيدا 3 مرات باستخدام زيت زبدة الفول السوداني المعقم بحجم متساوي لإزالة أي حمض متبقي.
ملاحظة: الألواح مناسبة للاستخدام الفوري أو يمكن تجفيفها بالهواء وتخزينها عند 2-8 درجات مئوية حتى الحاجة.
- يتم تخفيف كولاجين الفئران من النوع الأول في حمض الخليك بسعة 20 ملليمول (مذاب في ماء مقطر معقم) إلى تركيز عمل 50 ميكروغرام/مل وإضافته إلى وعاء الاستزراع. احتضن التمارين عند RT لمدة ساعة واحدة.
- إعادة تعليق الحبيبات الخلوية التي تم الحصول عليها في الخطوة 3.6 أو الخطوة 4.5.4 في 10 مل من وسط تكاثر الميوبلاست (MPM) الذي تم تدفئته مسبقا إلى 37 درجة مئوية.
- تحضير MPM لعضلات الفئران البالغة التي تحتوي على DMEM عالي الجلوكوز، 20٪ FBS، 10٪ مصل حصان (HS)، 0.5٪ مستخلص جنين الدجاج (CEE)، عامل نمو الأرميات الليفية الأساسية 20 نانوغرام/مل (bFGF) مذاب فيH2O مقطر معقم، و1٪ من P/S أو MPM لأسرار الفئران الحديثة التي تحتوي على وسط F10 (يدعم نموا أكثر تحكما وانتقائيا لزراعة حديثي الولادة). التي تحتوي على نسبة أعلى من الأرومات الليفية)، 20٪ FBS، 10٪ HS، 0.5٪ CEE، 20 ng/mL bFGF، و1٪ من P/S.
ملاحظة: أضف bFGF مباشرة إلى وسط الزراعة إلى تركيز نهائي يبلغ 20 نانوغرام/مل. يعد bFGF ضروريا للحفاظ على الحالة غير المميزة للعضلات العضلية وتعزيز تكاثرها29.
كما يعزز CEE نمو وتكاثر الخلايا العضلاتية، ويلعب دورا مهما في الحفاظ على زراعة العضلات العضلية الصحية من خلال منع اندماج العضلات العضلي تلقائيا 14,30,31. - بمجرد أن تصل الزراعة إلى نقاء عضلي أكبر (عادة بعد ثلاث مرات)، يمكن تحويل الوسط في الخلايا العضلية حديثي الولادة إلى MPM يتكون من خليط 1:1 من DMEM عالي الجلوكوز وF10، ثم إلى التركيبة القياسية لميوبلاستيك الفأر البالغة.
ملاحظة: من المهم التحقق من النقاء الأولي مسبقا، لأن التغيرات في الوسط ستلغي ميزة النمو الانتقائي للعضلات على الأرومات الليفية. - الخلايا التي تسبق الصبغة.
- الطلاء الأول
- الخلايا العضلية البالغة: خلايا بذور على ألواح مغطاة بالكولاجين. أبق اللوحة في حاضنة بدرجة حرارة 37 درجة مئوية وثاني أكسيد الكربون2 لمدة 24 ساعة.
- الخلايا العضلية الوليدية حديثي الولادة: وضع الخلايا على أطباق مغطاة بالكولاجين وحضانة لمدة 24 ساعة. حافظ على الزراعة في MPM مع إضافة وسط F10 (انظر القسم 5.4)، ما لم يذكر خلاف ذلك.
ملاحظة: في هذه المرحلة، يكشف الفحص المجهري عن مزيج غير متجانس من شظايا العضلات والخلايا (الشكل 2A).
تظهر الخلايا الليفية حديثي الولادة قدرة تكاثر عالية، وزيادة في مرونة الهيكل الخلوي (تتميز بشبكة أكتين-ميوزين أقل صلابة ودوران بؤري أكثر ديناميكية)، وتظهر ملفات تعبير إنتغرين مميزة، مقارنة بالأرومات الليفية البالغة32,33. تمكن هذه الخصائص من الالتصاق فعال بأسطح الزراعة حتى في غياب الطلاءات المصفوفية الخارجية مثل الكولاجين. لذلك، بالنسبة لبلاستات العضلة الوليدية الوليدية، يمكن استبدال الصفائح المغطاة بالكولاجين بالبلاستيك القياسي لزراعة الأنسجة غير المطلية، رغم أن ذلك قد يزيد من عدد الصفائح المسبقة المطلوبة.
- الطلاء المسبق الثاني
- الخلايا العضلية البالغة: باستخدام ماصرة مصلية بسعة 10 مل، انقل الخلايا المعلقة في MPM بلطف إلى صفيحة مغطاة بالكولاجين وتم تدفئتها مسبقا إلى 37 درجة مئوية. اشطف الصفيحة الأصلية بمقدار 1-2 مل من MPM الدافئ لاستعادة أي خلايا غير متبقية. حافظ على اللوحة في حاضنةCO2 بدرجة حرارة 37 °م لمدة 6-8 ساعات.
ملاحظة: يجب مراقبة العملية بعناية بواسطة مجهر التباين الطوري لضمان جمع جميع الخلايا غير الملتصقة، التي تمثل الطيف الكامل للخلايا العضلية، ونقلها إلى ألواح زراعة جديدة. - العضلات العصبية الوليدية: كرر الطلاء المسبق الثاني على ألواح مغطاة بالكولاجين لمدة 16 ساعة أخرى، مع شطف الصفيحة الأصلية بمقدار 1-2 مل من MPM F10 الدافئ لاستعادة أي خلايا غير متبقية.
ملاحظة: ستظل الخلايا الكبيرة، ومعظمها من الأرومات الليفية، ملتصقة بقاع الصفيحة المغطاة بالكولاجين (الشكل 2B والشكل 3).
- الخلايا العضلية البالغة: باستخدام ماصرة مصلية بسعة 10 مل، انقل الخلايا المعلقة في MPM بلطف إلى صفيحة مغطاة بالكولاجين وتم تدفئتها مسبقا إلى 37 درجة مئوية. اشطف الصفيحة الأصلية بمقدار 1-2 مل من MPM الدافئ لاستعادة أي خلايا غير متبقية. حافظ على اللوحة في حاضنةCO2 بدرجة حرارة 37 °م لمدة 6-8 ساعات.
- الطلاء الأول
- خلايا الطلاء على الصفائح المغطاة بالماتريجيل
- حضر محلول مادة بنسبة 10٪ عن طريق تخفيف مادة الماتريجيل باستخدام DMEM البارد. باستخدام رأس موزع، غط سطح الطبق بشكل متساو حتى يغطى بالكامل. دع ماتريغيل يبلمر عند 37 درجة مئوية لمدة 15 دقيقة.
ملاحظة: يجب إجراء طلاء الماتريجيل على الجليد، لأنه يبلمر بسرعة عند الريال. - نقل الخلايا غير الملتصقة من صفيحة مغطاة بالكولاجين إلى صفيحة مغطاة بالماتريجيل. اشطف الصفيحة المغطاة بالكولاجين بسعة 1-2 مل من MPM الدافئ لاستعادة أي خلايا متبقية. حافظ على اللوحة في حاضنة ثاني أكسيد الكربون على 37 درجة مئوية لمدة 72 ساعة.
- بالنسبة للأبلوم العضلية البالغة، تأكد من أن الثقافة تحتوي بشكل رئيسي على عضلات عضلية صغيرة ومستديرة ملتصقة بعد 72 ساعة (الشكل 2C). قد توجد أيضا بعض الأرومات الليفية الكبيرة ذات الشكل المثلث، ولكن بكثافة منخفضة جدا. إذا كان عدد كبير من الأرومات الليفية لا تزال موجودة بعد الزرع على Matrigel، كرر خطوات الطلاء قبل الطلاء لمدة 2-6 ساعات، حسب وفرة الأرومات الليفية.
- بالنسبة للأرميات العضلية الوليدية، قم بإجراء ممرات إضافية مع خطوة ما قبل الطلاء لإزالة الأرومات الليفية وإثراء تدريجيا مجموعة الخلايا العضلية من الثقافة غير المتجانسة الأولية.
- حضر محلول مادة بنسبة 10٪ عن طريق تخفيف مادة الماتريجيل باستخدام DMEM البارد. باستخدام رأس موزع، غط سطح الطبق بشكل متساو حتى يغطى بالكامل. دع ماتريغيل يبلمر عند 37 درجة مئوية لمدة 15 دقيقة.
6. صيانة وتوسيع الخلايا العضلية
- حافظ على الميوباست المنقاء في الزراعة عن طريق حضانها في MPM، واستبدال الوسط كل يومين.
ملاحظة: تجنب السماح للخلايا بتجاوز التقاء 60-70٪، لأن الكثافة الأعلى قد تحفز اندماج الخلايا العضلي تلقائيا ويبدأ التمايز. - إذا لزم الأمر، قم بتوسيع الزراعة بتقسيم الخلايا إلى عدة أطباق مغطاة ب 10٪ ماتريجل.
ملاحظة: الأرومات العضلية البالغة: يوصى عادة بإجراء 2-3 مرات، حيث تزيد الممرات الإضافية من استطالة الخلايا والاندماج التلقائي. عادة ما تخضع الخلايا العضلية الوليدية لخمس إلى ست مرات دون اندماج تلقائي كبير.- لتوسيع عدد الخلايا العضلية، استخدم مزيجا بنسبة 1:1 من DMEM عالي الجلوكوز وF10 في MPM بدءا من المقطع 3، بمجرد أن يقل تلوث الأرومات الليفية بشكل كبير. وفقا للمقطع الرابع، تتكون الثقافة عادة من مجموعة شبه نقية من الخلايا العضلية؛ التحول إلى MPM لعضلات الفئران الوليدة.
7. تمايز الخلايا العضلية
- تخيل الخلايا تحت المجهر. تأكد من أن الخلايا متجانسة نسبيا، صغيرة، ودائرية أو على شكل مغزل، وتتكاثر بنشاط، وليست مكتظة. هذا يضمن أن الثقافة جاهزة للتميز.
- غط سطح زراعة الأنسجة المناسب للتصميم التجريبي بنسبة 10٪ ماتريجيل، كما هو موضح في القسم 5.6.1.
ملاحظة: على الرغم من أن جودة التصوير أفضل على الأسطح الزجاجية، إلا أن الخلايا العضلية أظهرت انخفاضا في التعلق والقدرة على البقاء في الغرف الزجاجية، ويرجح أن ذلك يعود إلى انخفاض التصاق بروتين ماتريجيل مقارنة بالبلاستيك34 في زراعة الأنسجة. - افصل الخلايا بإضافة 2 مل من 0.25٪ تريبسين-إيدتا وحضن عند حرارة 37 درجة مئوية في حاضنة CO₂ لمدة 2-5 دقائق.
- افحص الزراعة تحت المجهر للتأكد من أن جميع الخلايا قد انفصلت. بمجرد اكتمال الفصل، أضف 2 مل من وسط المعادلة (انظر القسم 3.1).
- قم بعمل نظام تعليق الخلية بالطرد المركزي عند 300 × جرام عند RT لمدة 10 دقائق لدفع الهواء.
- أعد تعليق وزرع العضلات العضلية الأولية على ألواح الزراعة المغطاة بالماتريجيل وحضن عند حرارة 37 درجة مئوية في حاضنة CO₂ لمدة 24 ساعة.
- في اليوم التالي، استبدل MPM بوسط تمايز للألياقات العضلية (MDM) يحتوي على DMEM عالي الجلوكوز، 5٪ HS، و1٪ P/S.
ملاحظة: لتحقيق تكوين أنابيب الميوتيوب عالية الجودة، تأكد من وصول بلاستات العضلة إلى التقاء بنسبة 80-90٪ قبل التحول إلى وسط تمايز. إذا لم يتم الوصول إلى الالتقاء المطلوب في اليوم التالي، استمر في الحضانة حتى يتم تحقيق الكثافة المثلى.
8. تلطيخ المناعة في الخلايا العضلية وأنابيب العضلة
- اغسل الخلايا مرتين مع قرص PBS واحد لإزالة الوسط المتبقي.
- ثبت الخلايا في 4٪ بارافورمالديهيد (PFA) في 1x PBS لمدة 15 دقيقة عند العلاج الطبيعي. سيتم تنفيذ خطوات إضافية في RT إذا لم يتم تحديد خلاف ذلك.
ملاحظة: PFA سام. دائما استخدم محاليل PFA في غطاء بخار كيميائي أثناء ارتداء القفازات ومعطف المختبر وحماية العين. تجنب الاتصال المباشر بالجلد أو العينين. التخلص من النفايات التي تحتوي على PFA وفقا للوائح المؤسسية الكيميائية والمخاطر البيولوجية. - حضن الخلايا الثابتة بكلوريد الأمونيوم 50 مللي مولار (NH₄Cl) لمدة 30 دقيقة عند التسخين السريع (ويفضل على جهاز هزاز، 50-100 دورة في الدقيقة) لتبريد مجموعات الألدهيد الحرة وتقليل الارتباط غير النوع أثناء خطوات التلوين اللاحقة.
- اغسل الخلايا لمدة 3 × 5 دقائق على RT مع 1x PBS (على شاكر، 50-100 دورة في الدقيقة).
- قم بإجراء نفاذية الخلايا بنسبة 0.2٪ من ترايتون X-100 في 1x PBS لمدة 10 دقائق (على جهاز هزاز).
- اغسل الخلايا لمدة 2-3 × 5 دقائق باستخدام 1x PBS (على هز).
- امنع ارتباط الأجسام المضادة غير النوعية عن طريق حضانة الخلايا في محلول حاجب (مصل حصان 2٪ في 1x PBS يحتوي على 0.02٪ ترايتون X-100) لمدة 1.5 ساعة عند RT (على جهاز شاكر، 50-100 دورة في الدقيقة).
- حضن الخلايا طوال الليل عند درجة حرارة 4 درجات مئوية مع تخفيف الأجسام المضادة الأولية (Pax7 - 1:100؛ MHC - 1:50) في محلول الانسداد (على الهزاز، 50-100 دورة في الدقيقة).
- اغسل الخلايا 3 مرات 10-15 دقيقة مع 1x PBS يحتوي على 0.02٪ ترايتون X-100 (على شاكر، 50-100 دورة في الدقيقة).
- حضن الخلايا بأجسام مضادة ثانوية مناسبة مخففة بمقدار 1:250 في محلول حجب لمدة 1-1.5 ساعة عند RT (على جهاز هزاز ومحمي من الضوء).
- اغسل الخلايا لمدة 3 مرات 10-15 دقيقة باستخدام 1x PBS يحتوي على 0.02٪ Triton X-100 (على شاكر، 50-100 دورة في الدقيقة).
- يتم تركيب العينات باستخدام وسط تثبيت مناسب وغطاء منزلق، كما هو محدد في التصميم التجريبي.
- للتخزين طويل الأمد، حافظ على العينات المثبتة عند 4 درجات مئوية، محمية من الضوء.
النتائج
يؤدي التنفيذ الناجح لهذا البروتوكول إلى زراعة الخلايا العضلية الأولية ذات الصلاحية العالية والمتميزة شكليا مشتقة من عضلات الأطراف الخلفية لكل من الفئران البالغة وحديثة الولادة. من خلال دمج الترشيح المتسلسل عبر مصافلات الخلايا ذات حجم المسام المتناقص مع خيار الفرز المغناطيسي للخلايا (MACS)، يتيح هذا البروتوكول عزل مجموعة من الخلايا العضلية عالية التنقية. لتحسين نقاء خلايا Pax7+ المعزولة، تم دمج خطوة ما قبل الطلاء المحسنة. بعد هذه الخطوة (قسم البروتوكول 5)، تبقى معظم الخلايا الليفية والخلايا غير العضلية ملتصقة (الشكل 3) بالسطح المغطى بالكولاجين الأولي، بينما تبقى الخلايا العضلية معلقة ثم تلتصق بالصفائح المغطاة بالماتريجيل (الشكل 2B). استنادا إلى فعالية مكونات محددة من وسط تكاثر الألبومات العضلية (MPM)، بما في ذلك التركيز العالي في المصل، والاستكملات ب bFGF ومستخلص جنين الدجاج (CEE)، واستخدام طلاء ماتريجيل - توفر هذه التركيبة، التي نحنها بشكل محسن، ميزة تكاثرية واضحة للأرواح العضلية مقارنة بالخلايا غير العضلية 14,30,31,35. لذا، خلال 72 ساعة من الزراعة في MPM، يجب أن تسود الخلايا العضلية الصغيرة المستديرة إلى المغزل ذات نسبة نووية إلى سيتوبلازمية عالية (الشكل 2C). قد يبقى عدد صغير من الخلايا الكبيرة المسطحة الشبيهة بالخلايا الليفية، ويمثل عادة أقل من 3٪ من الزرعة.
يعتمد إنتاج الخلايا بعد 72 ساعة من العزل باستخدام هذا البروتوكول على عمر الحيوانات المتبرعة. بالنسبة للأرميات العضلية المعزولة من فأر بالغ واحد باستخدام أربع عضلات في الأطراف الخلفية (العضلات المعدية، العضلية العضلية، الساق الأمامي، والعضلة الطويلة للذراعين) من كلا الساقين، فإن العائد النموذجي هو حوالي 2-4 × 10⁶ خلايا لكل حيوان. أكثر من 97٪ من الخلايا المعزولة من الفئران البالغة (**p < 0.01) وحديثة الولادة (***p < 0.0001) كانت من الخلايا الميوجينية الوثنية، كما يشير تعبير Pax7+ (الشكل 4A,B)، مما يؤكد الإثراء العالي للسلف العضلي الميوجني. تم إجراء هذا التقييم للنقاء القائم على Pax7 بعد الانتهاء من سير عمل الإثراء الكامل، بما في ذلك الطلاء المسبق الذي يتبعه MACS و/أو التوسعة، وليس على الكسور المبكرة الملتصقة بالصبغة.
حققت العضلات الوليدية نقاوة عالية مع أو بدون MACS (الشكل 4A,B)، مما جعل هذا البروتوكول مناسبا للمختبرات ذات مستويات الدعم الفني المتغيرة. ومع ذلك، عند حذف MACS، تتطلب خطوات إضافية في الطلاء المسبق للوصول إلى نقاء مماثل.
بالنسبة للاسترواح العضلية البالغة، لم تجر مقارنة إحصائية مباشرة بين مجموعات MACS الفرز وغير المفترضة. ومع ذلك، وبالنظر إلى انخفاض القدرة التكاثرية والالتزام الأكبر بالتمييز، من المتوقع أن يعزز MACS الإثراء مقارنة بالطلاء المسبق فقط.
عند التحول إلى وسط التمايز (MDM) بعد الوصول إلى التقاء 80-90٪، تندمج الخلايا العضلية بكفاءة لتشكيل أنابيب عضلية ممدودة متعددة النوى خلال 48-72 ساعة. يمكن رؤية هذه الأنابيب العضلية بسهولة بواسطة مجهر التباين الطور (الشكل 2D) ويمكن تأكيدها أكثر من خلال التلوين المناعي لسلسلة الميوسين الثقيلة (MHC) (الشكل 5A,B). وجود هياكل ساركوم منظمة في أنابيب العضلة المتمايزة (الشكل 5B) يشير إلى نضج هيكلي يتوافق مع التمايز العضلي تحت هذه الظروف الزراعية.
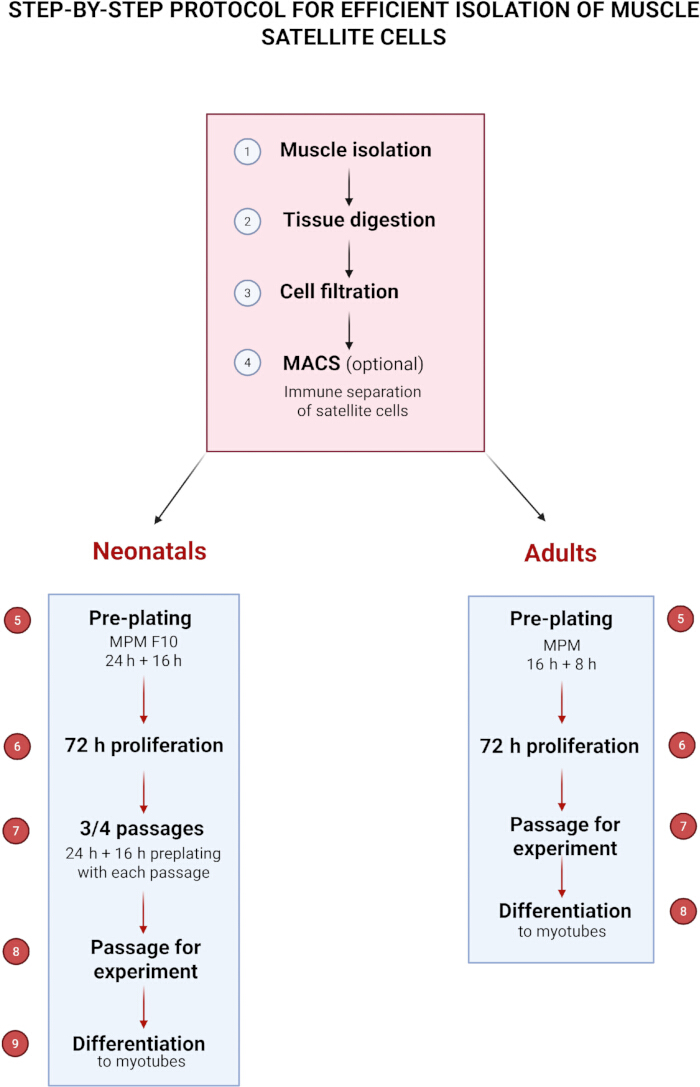
الشكل 1: بروتوكول خطوة بخطوة لعزل خلايا القمر الصناعي العضلية بكفاءة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
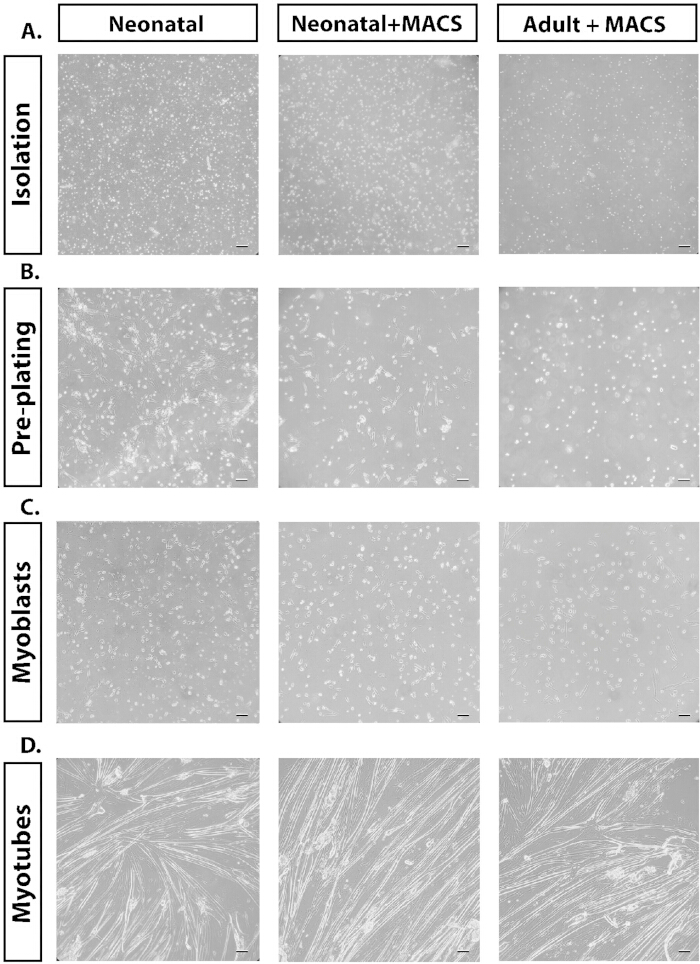
الشكل 2: صور المجهر التباين الطور التمثيلية للمنهجيات المختلفة التي نوقشت في النص. (أ) صور تباين الطور (20x) لعزل الخلايا بعد الهضم. (ب) تباين الطور (20x) في الطلاء المسبق للثقافات التي تحتوي على الأروى الليفية الملحقة، مع العضلات العضلية غير المتصلة. (ج) تباين الطور (20x) للميوبلاست المتكاثرة بمجرد الوصول. (د) تباين الطور (20x) لأنابيب العضلة المتمايزة. شريط المقياس = 50 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
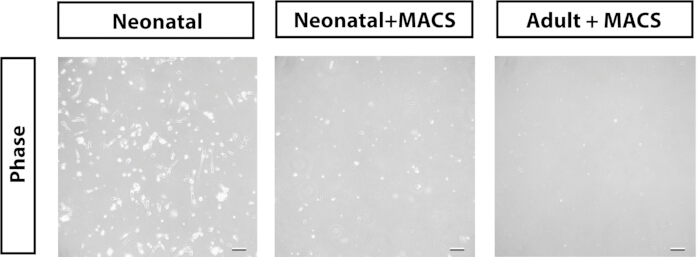
الشكل 3: صور مجهرية متباين الطور التمثيلية (20×) للخلايا المتبقية متصلة بعد الخطوة الأولى قبل الطلاء الأول. شريط المقياس = 50 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
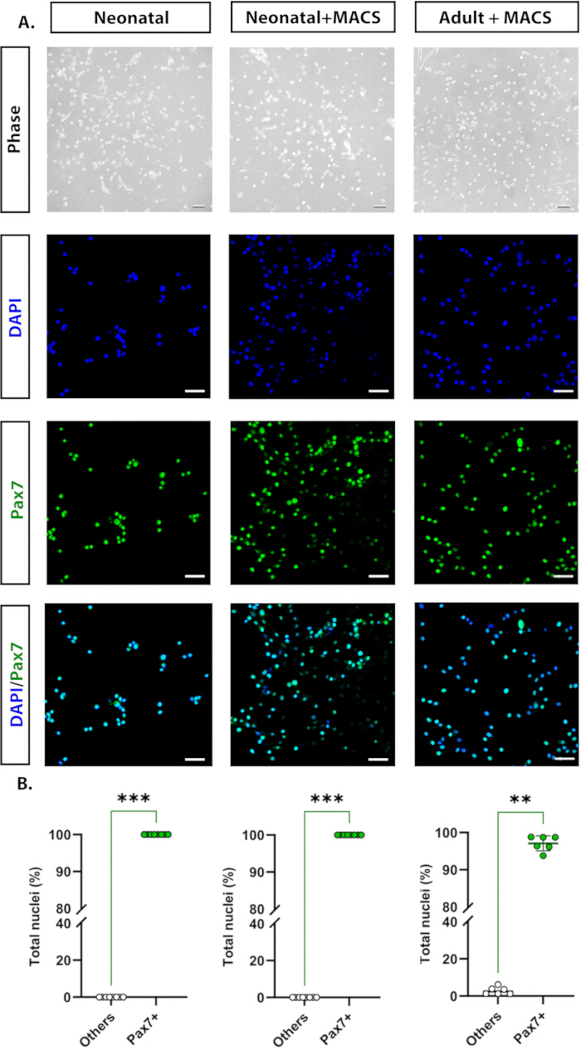
الشكل 4: صور تمثيلية التقطت تحت مجهر تباين الطور (20x) والكيمياء المناعية الخلوية (40x). (A) Pax7+ (أخضر) والنوى المصبوغة ب DAPI (أزرق فاتح)، وتزامنها في القنوات المدمجة. (ب) تحليل نقاء زراعة الخلايا العضلية، وقياس نسبة خلايا Pax7+ التي تم تطبيعها إلى النوى لكل حقل مكتسب (حقل واحد لكل بئر، في ستة آبار على الأقل). تم تكرار التصبغ المناعي ثلاث مرات على الأقل، مع تكرار تقني من اثنين إلى ثلاثة في كل تجربة. **p < 0.01، ***p < 0.0001 (تم تحليل الدلالة الإحصائية باستخدام اختبار مان ويتني U ). شريط المقياس = 50 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
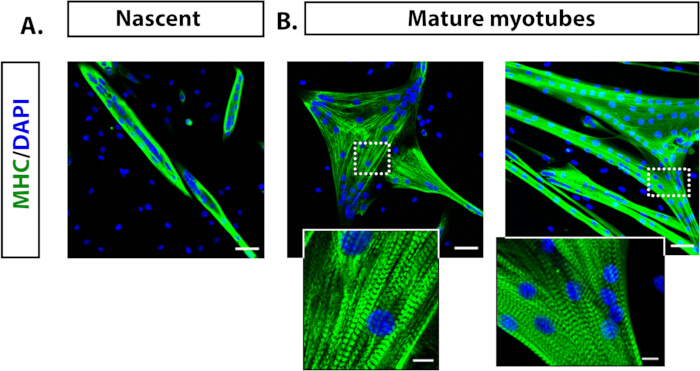
الشكل 5: صور ممثلة للفلورة المناعية تظهر أنابيب العضلة المتمايزة عن الخلايا العضلية البالغة للفئران. (أ) أنابيب العضلة الناشئة (3 أيام في الزراعة) تم تصويرها عند 20 ضعف MHC (الأخضر) والنوى الملونة ب DAPI (أزرق فاتح). (ب) أنابيب الميوتيوب الناضجة (6 أيام في الزراعة) تم تصويرها عند 20x وتفاصيل بنية نمط الساركوميك المحددة من خلال تلوين الميوسين. تم تكرار التصبغ المناعي ثلاث مرات على الأقل، مع تكرار تقني من اثنين إلى ثلاثة في كل تجربة. شريط المقياس = 50 ميكرومتر؛ شريط المقياس المكبر = 10 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
تشكل الخلايا الفضائية (SCs) المجموعة الرئيسية للجذع العضلي العضلي والسلف المسؤولة عن نمو العضلات الهيكلية وإصلاحها وتجديدها36,37. قدرتها على العودة إلى دورة الخلية والتمايز إلى ألياف عضلية ناضجة تجعلها لا غنى عنها لدراسة بيولوجيا العضلات الهيكلية. عند عزلها وزراعتها في ظروف محددة في المختبر، تتكاثر الخلايا العضلية كبلاستات يمكن تحفيزها على التمايز والاندماج في أنابيب العضلة متعددة النوى، مما يعيد تلخيص الجوانب الرئيسية لتكوين العضلات الذي لوحظ في الجسم الحي.
تمكن طريقتنا من استعادة مجموعات الخلايا المتجانسة والقابلة للحياة من خلال تعديل المعايير الرئيسية بعناية، بما في ذلك تركيز الإنزيمات، ومدة الهضم، وظروف الزراعة، المصممة خصيصا لأنسجة حديثي الولادة. يضمن الجمع بين التفكك الإنزيمي والميكانيكي، يليه الترشيح متعدد الخطوات وفرز الخلايا المغناطيسي الاختياري (MACS) مع الطلاء المسبق، إنتاجية عالية ونقاء للخلايا. ومن المهم أن هذا البروتوكول يتيح توليد الثقافات التي عادة ما تتجاوز 97٪ من الموسعات الميوجينية Pax7+ ، مما يجعلها مناسبة لاختبارات التمايز اللاحقة والدراسات الجزيئية.
تعتمد تقنية الطلاء المسبق على خصائص الالتصاق المختلفة للأرومات الليفية وSCs 16,38,39. تعد هذه الخطوة حاسمة بشكل خاص في تحديد نقاء الزرعة، حيث يمكن أن تؤدي الانحرافات الطفيفة في التوقيت أو الغسل إلى تلوث الأرومات الليفية أو تقليل تعافي الخلايا العضلية. يعد إدراج خطوة الطلاء المسبق ذات الوقت الدقيق ميزة خاصة، حيث يفصل الخلايا العضلية بكفاءة عن الخلايا الليفية وغيرها من التجمعات غير الميوجينية الأخرى. يمكن استخدام هذا النهج في غياب معدات الفصل المغناطيسي أو كإجراء إضافي لزيادة نقاء الزراعة العضلية الميوبلاستية. في بروتوكولنا، قمنا بتحسين هذه الخطوة باستخدام صفائح مغطاة بالكولاجين وفترة ما قبل الطلاء بدقة، والتي تفصل الخلايا العضلية بكفاءة عن الخلايا الليفية وغيرها من التجمعات غير العضلية.
تقدم منهجي آخر في البروتوكول الحالي هو استخدام وسط تكاثر الخلايا العضلية المحدد (MPM) المحسن لكل من الخلايا البالغة وحديثي الولادة. يدعم مزيج التركيز العالي في المصل، ومستخلص جنين الدجاج (CEE)، وعامل نمو الأرمية الليفية الأساسية (bFGF) التكاثر المستمر والحفاظ على نمط ظاهري غير متمايز. يساهم CEE، على وجه الخصوص، بعوامل تعزز نمو القدرات التي تعزز القدرة على البقاء وتؤخر الاندماج التلقائي، بينما يحافظ bFGF على هوية الخلايا العضلية من خلال تنشيط مسارات الإشارة الكانونية29،31. يحسن استخدام الأسطح المغطاة بالمتربيض بشكل أكبر من التصاق الخلايا وكفاءة التكاثر، مما يساهم في الثبات العالي والتجانس الشفهي الذي لوحظ خلال 72 ساعة من العزل.
عند الانتقال إلى وسط التمايز، تندمج الخلايا العضلية المنقاة بسهولة في أنابيب عضلية متعددة النوى وقابلة للانقباضات تعبر عن سلسلة الميوسين الثقيلة (MHC)، مما يظهر الحفاظ على الجهد العضلي والنضج البنيوي. تعد الثقافات الناتجة مناسبة جدا لدراسات تجديد العضلات الهيكلية، وإشارات الخلايا، وتنظيم النسخ، ونمذجة الأمراض. التقارب عامل حاسم، حيث أن الثقافات ذات التقاء منخفض جدا ستفشل في التقدم، بينما التقارب العالي جدا سيؤدي إلى اندماج وتمايز في الخلايا الصمية. يجب عدم الاحتفاظ بالخلايا العضلية في نفس طبق الزراعة لأكثر من 5 أيام، بغض النظر عن التقاء العلاقات، لأن الحضانة الطويلة يمكن أن تعزز التمايز أيضا.
رغم هذه المزايا، تظل بعض الخطوات حساسة للأعطال. يجب معايرة الهضم الإنزيمي بعناية لتحقيق توازن بين تفكك الأنسجة وحيوية الخلايا. توقيت الطلاء المسبق وكثافة الخلايا قبل التمايز والتعامل اللطيف أثناء التفكك كلها تؤثر بشكل كبير على الإنتاجية والنقاوة وإمكانية الاندماج. المشاكل الشائعة مثل التلوث المستمر للأرومات الليفية، انخفاض الإنتاجية، التمايز المبكر، ضعف التعلق، أو ضعف تكوين أنابيب العضلة يمكن معالجتها غالبا من خلال تعديلات طفيفة في الطلاء المسبق، أو مكملات المتوسط، أو تقنية الطبق.
استكشاف الأخطاء والاعتبارات العملية:
تتطلب نقاء العزل والهضم الإنزيمي اهتماما دقيقا، حيث يمكن أن تؤثر التغيرات في نوع الإنزيم، التركيز، وقت الحضانة، أو تقطيع الأنسجة بشكل كبير على كل من إنتاج الخلية ونقاء الزرعة. قد يؤدي سوء الهضم إلى ترك الأنسجة سليمة جزئيا، مما يقلل من إطلاق الSCs ويسد المصفاة في الخطوة التالية، بينما قد يبدو فرط الهضم بصريا مشابها للغشاء الحيوي وقد يؤثر على بقاء الخلايا. لذلك، فإن التحسين الدقيق ضروري لتحقيق نتائج قابلة للتكرار.
الترشيح واستخدام المصفاة أمران حاسمان أيضا، لأن الترشيح غير الكامل أو غير الفعال يمكن أن يترك حطاما أو تجمعات في تعليق الخلية، مما قد يتداخل مع التصاق الخلوي ويقلل من نقاء الزرعة. استخدام مصافي بحجم مناسب، وتمرير التعليق بلطف من خلالها، وترطيب المرشحات مسبقا يمكن أن يحسن إزالة الحطام مع تقليل الإجهاد الميكانيكي على الخلايا. إذا انسدت شظايا الأنسجة الكبيرة المرشح، يجب استبداله بمصفاة جديدة بدلا من دفع التعليق للعب، حيث يمكن أن تحتجز الخلايا على سطح المرشح، مما يؤدي إلى انخفاض الإنتاجية. تكرار الترشيح باستخدام فلتر جديد عند الحاجة يمكن أن يعزز استعادة العضلات العضلية القابلة للحياة.
يمكن أن يحدث التمايز المبكر أو الفاشل عندما تصبح الثقافات كثيفة جدا، حيث قد يؤدي ذلك إلى تمايز تلقائي أو اندماج مبكر، مما يؤثر على توقيت التجارب. لذلك، فإن مراقبة كثافة الخلايا وضبط كثافة البذر أو حجم الوسط قبل التمايز أمر بالغ الأهمية. في حالات التقاء مفرط، يمكن للانقسام الجزئي أو إعادة البذر اللطيفة أن يساعد في الحفاظ على التكاثر دون التسبب في تكوين أنابيب العضلة غير المقصود. وعلى العكس، إذا لم يتم الوصول إلى التقاء المطلوب قبل بدء التفاضل، يجب الاستمرار في الحضانة حتى يتم تحقيق الكثافة المثلى لضمان التفاضل الفعال. الحفاظ على الخلايا العضلية بعد الإطار الزمني الموصى به (>5 أيام) يزيد من خطر التمايز التلقائي ويقلل من القدرة على التكاثر، بغض النظر عن التقاء الأجزاء الأولية. التقييم المنتظم لشكل الخلية، والالتزام بجداول الزمن، والتغيرات في الوقت المناسب في الأوساط ضرورية للحفاظ على قابلية البقاء وإمكانية التمايز.
يمكن تقليل التلوث المستمر للأنسجة الليفية من خلال معالجة الأنسجة الدقيقة، بما في ذلك الإزالة الدقيقة للأنسجة الضامة والدهون أثناء تشريح العضلات. يعد تحسين خطوة الطلاء المسبق مهما بشكل خاص، حيث تلتصق الأرواح الليفية الملتصقة بسرعة بالأسطح غير المطلية بينما تبقى الخلايا الليفية معلقة. استخدام ألواح الزراعة المغطاة بالكولاجين مع وسط تكاثر الخلايا العضلية المحدد مع bFGF يعزز التمدد الانتقائي للأروى العضلية مع الحد من نمو الأرومات الليفية. يمكن تحقيق تنقية إضافية من خلال استراتيجيات اختيار سلبية مثل MACS لاستنزاف أعداد الأرومات الليفية. المراقبة المجهرية المنتظمة ضرورية لاكتشاف النمو المبكر للأرومات الليفية وتمكين التدخل في الوقت المناسب.
باختصار، يعزز هذا البروتوكول قابلية تكرار وكفاءة عزل الخلايا العضلية الأولية من خلال دمج التنقية المتسلسلة، وظروف الزراعة المثلى، وخيارات التنقية القابلة للتكيف. ومن المهم أنه ينتج خلايا Pax7+ غنية بدرجة عالية بشكل موثوق، والتي يمكن استخدامها أيضا في الدراسات المحكمة لبيولوجيا SCs، والالتزام الميوجني، وديناميكيات التمايز.
على عكس البروتوكولات المحسنة للتوسع التسلسلي المطول، والتي يمكن أن تغير سلوك الخلية وتقلل من الجهد العضلي والقدرة على الاندماج، فإن طريقتنا مصممة عمدا للحفاظ على الخلايا ذات الهوية الميوجينية القوية وكفاءة عالية في الاندماج. هذا التركيز مفيد للتطبيقات التي تتطلب أهمية فسيولوجية، وتمييزا ميوجيني فعالا، والحفاظ على خصائص ال SC المحددة، خاصة في التجارب التي تركز على دراسة التمايز وتجديد الميوجين.
الإفصاحات
المؤلفون لا يفرضون أي تضارب مصالح.
شكر وتقدير
تم إجراء التصوير الكونفوكلي في مختبر تركيب ووظيفة الأنسجة التصويرية، الذي يعمل كمرفق تصوير أساسي في معهد نيتسكي لعلم الأحياء التجريبي ويعد جزءا من بنية العقدة البولندية الأوروبية للتصوير الحيوي.
وقد تم دعم هذا العمل من المركز الوطني للعلوم في بولندا (منحة سوناتا 2022/47/D/NZ3/02737 لليا ليهكا ومنحة سوناتا بيس 2020/38/E/NZ4/00314 إلى غريغورز سومارا)، وتمويل قانوني من وزارة العلوم والتعليم العالي لمعهد نينكي. وقد دعم هذا العمل المشروع الذي مولته وزارة التعليم والعلوم بناء على العقد رقم 2022/WK/05 (عقدة التصوير الحيوي الأوروبية البولندية "عقدة المجهر الضوئي المتقدم في بولندا").
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.25٪ trypsin-EDTA | جيبكو | 25200-056 | |
| 100 وميكرو؛ مصفاة الخلايا M | VWR | 732-2759 | |
| 30 وميكرو؛ M Strainer | ميلتيني بيوتيك | 130-041-407 | |
| 40 وميكرو؛ مصفاة الخلايا M | VWR | 732-2757 | |
| 70 وميكرو؛ مصفاة الخلايا M | VWR | 130-095-823 | |
| حمض الخليك | بوش | 568760114 | تم إذابته في dH2O إلى تركيز نهائي 20 ملمولار وتعقيم عبر 0.2 وميكرو؛ مرشح m |
| أليكسا فلور 488، حمار مضاد للأرنب | إنفيتروجين | A21206 | مذاب في محلول حجب (انظر القسم 8.7) عند تخفيف 1:250 |
| أليكسا فلور 488، مضاد للفئران للماعز | أبكام | ab150113 | مذاب في محلول حجب (انظر القسم 8.7) عند تخفيف 1:250 |
| كلوريد الأمونيوم (NH4Cl) | بيوشوب | AMC303.500 | إذابته في الماء إلى تركيز نهائي 50 ملليمولار |
| وسائط تركيب مضاد التدرج | فيكتاشيلد | H-2000-10 | |
| الأجسام المضادة المضادة ل-PAX7 | أبكام | ab187339 | مذاب في محلول حجب (انظر القسم 8.7) عند تخفيف بنسبة 1:100 |
| عامل نمو الأرومات الليفية الأساسية | كورنينغ | 354060 | تذوب في dH2O المعقم إلى تركيز مخزون 10 وميكرو؛ g/mL |
| بيتادين، 100 ملغ/مل | إيجيس للأدوية | ||
| صفيحة زراعة الخلايا، 6 بئر، خلية+ | سارستيدت | 83.3902.300 | |
| مستخلص جنين الدجاج | MP Biomedicals | 2850145 | |
| الكولاجين I، ذيل الجرذ | جيبكو | A10483-01 | مذاب في 20 مللي مولار حمض الخليك |
| الكولاجيناز، النوع الأول | سيغما | C0130-500MG | تم إذابته في DMEM وتعقيم باستخدام 0.2 وميكرو؛ مرشح m |
| أنبوب التفكك (أنابيب GentleMACS C) | ميلتيني بيوتيك | 130-093-237 | |
| نسر المعدل من دولبيكو متوسط وعالي الجلوكوز | جيبكو | 31966-021 | |
| EDTA | إنفيتروجين | AM9260G | |
| أنابيب الطرد المركزي المخروطية فالكون، 15 مل | كورنينغ | 352096 | |
| أنابيب الطرد المركزي المخروطي فالكون، 50 مل | كورنينغ | 352070 | |
| مصل الأبقار الجنيني | جيبكو | 10082147 | |
| مصل الخيول | جيبكو | 26050088 | |
| كاشف الوسم المغناطيسي (مجموعة عزل الخلايا الفضائية) | ميلتيني بيوتيك | 130-104-268 | |
| فاصل مغناطيسي (فاصل MidiMACS) | ميلتيني بيوتيك | 130-042-302 | |
| Matrigel | كورنينغ | CLS356234 | تم إذابته في DMEM إلى تركيز 10٪ |
| بارافورمالديهايد، 4٪ في PBS | ثيرمو فيشر العلمي | J61899. AK | |
| البنسلين-ستريبتومايسين | جيبكو | 15140122 | |
| محلول ملحي مخزن بالفوسفات | VWR | 392-0334 | |
| عمود الفصل (أعمدة LS) | ميلتيني بيوتيك | 130-042-401 | |
| الجسم المضاد لميوسين عضلة الهيكل، MHC | سانتا كروز | SC-32732 | مذاب في محلول حجب (انظر القسم 8.7) عند تخفيف 1:50 |
| طبق TC، 100 × 20 مم | سارستيدت | 83.3902 | |
| مفكك الأنسجة (GentleMACS Dissociator) | ميلتيني بيوتيك | 130-093-235 | |
| ترايتون X-100 | سيغما-ألدرتش | X100-1L |
المراجع
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
إعادة الطباعة والأذونات
الوسوم
