يظهر SNRNP70 إمكانات كمؤشر تشخيصي لالتهاب المفاصل العظمي (OA)، مع تعبير أقل باستمرار في أنسجة التهاب المفاصل العظمي مقارنة بالمجموعات الضابطة. وقد يكون له أيضا تأثيرات مضادة للالتهابات، مما يشير إلى مسار علاجي. الدراسات الميكانيكية المستقبلية قد تساعد في تطوير إدارة العلاج المفتوح.
مقالة بحثية
يرتبط SNRNP70 بتوقيعات مرتبطة بالالتصاق البؤري والتهاب الخلايا الغضروفية في التهاب المفاصل العظمي
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
التهاب المفاصل العظمي (OA) هو مرض تنكسي في المفاصل يتميز بتحلل تدريجي للغضروف والتهاب زليلي، ومع ذلك لا تزال الدوافع الجزيئية الرئيسية لمسببه غير مفهومة بشكل كامل. هنا، أجري الفحص لمعرفة ما إذا كان SNRNP70—وهو مكون أساسي في مركب U1 snRNP الضروري لتوصيل ما قبل mRNA—يساهم في تقدم التهاب الدهشة الصبغية. أظهر تحليل عشرة مجموعات بيانات عامة للنسخ النصية أن SNRNP70 كان منخفضا باستمرار في غضروف الفتحة البصرية مقارنة بمجموعة الضوابط الطبيعية. أظهر التحليل التلوي أيضا دقة تشخيصية جيدة لالتهاب المفاصل الدهني، مع معدل تجميع للتحليل النفسي 0.92. في الخلايا الغضروفية الأولية للفئران التي تم تحفيزها بالإنترلوكين-1β (IL-1β)، تم كبح التعبير SNRNP70 تحت ظروف التهابية. لم يقلل التعبير القسري من SNRNP70 فقط من إنتاج الوسطاء الالتهابيين (IL-6 و MMP-13)، بل أعاد أيضا مكونات المصفوفة خارج الخلية الرئيسية (ECM) (ACAN و COL2A1) وعزز هجرة الخلايا الغضروفية وشفاء الجروح. أشارت علاقة بيرسون، تلتها إثراء KEGG، إلى أن إشارات الالتصاق البؤري كانت مسارا مرتبطا بتنظيم SNRNP70. دعمت تجارب الإنقاذ فكرة أن SNRNP70 يعزز قدرة إصلاح الخلايا الغضروفية جزئيا على الأقل، من خلال تفعيل هذا المسار. تشير هذه النتائج معا إلى أن SNRNP70 قد تعمل كمنظم لم يكن معروفا سابقا لوظيفة الغضروفية الالتهابية وتوازن الغضروف. كما تثير إمكانية وجود ارتباط ميكانيكي بين نشاط الشفط وتخليق المصفوفة التي تعبر عن الالتصاق البؤري، مما يستدعي تقييما إضافيا ل SNRNP70 كمؤشر تشخيصي مرشح أو هدف علاجي في الحمض الفصيلا.
المقدمة
يمثل التهاب المفاصل العظمي (OA) مرضا مفعلا شائعا يصيب بشكل رئيسي الأفراد الذين تبلغ أعمارهم 65 عاما فأكثر، ويؤثر على حوالي 7٪ من سكان العالم 1,2. ومن المدهش أنه بين عامي 1990 و2019، ارتفع انتشار الالتهاب المفاصل في العالم بنسبة مذهلة بلغت 113.25٪، وارتفعا من 247.51 مليون حالة إلى 527.81 مليونحالة 3. يتميز التهاب الفصى بشكل رئيسي بالتطور الخفي للتغيرات التنكسية داخل أنسجة المفاصل، مع تدهور الغضاريف والالتهاب الزليلي بشكل بارز 4,5,6. ومن الجدير بالذكر أن التحميل الميكانيكي الزائد والمسير الحتمي للزمن قد تم إثباتهما كأكثر عاملي الخطر وضوحا في سبب مرضه 7,8. بالإضافة إلى ذلك، تؤكد الدراسات المتزايدة الدور المحوري الذي يلعبه تنكس الغضروف الهلالي كعنصر أساسي في الأمراض المعقدة لالتهابالفصول 9. أظهرت الدراسات السابقة بشكل مقنع أن آفات الغضروف الهلالي تصيب 68٪ إلى 90٪ من مرضى التهاب المفاصل10,11.
على المستوى الجزيئي، تشير مجموعة متزايدة من الأدلة إلى أن الحمض الدهوي ليس مجرد نتيجة للضغط الميكانيكي الحيوي والشيخوخة، بل هو أيضا مرض مدفوع بتغيرات معقدة في تنظيم الجينات والتحكم بعد النسخ 12,13,14. من بين هذه الآليات، حظي السبليسوسوم باهتمام متزايد عبر سياقات الأمراض المختلفة. ومن المثير للاهتمام، أنه رغم أنه كان محور أبحاث واسعة في مسببات الالتهاب، إلا أن دور النسيج التناسلي في الالتهاب الدهني ظل غير دقيق بشكل ملحوظ 15,16,17. في جوهر الأمر، يمكن تصور السبليسوسوم كمعدن ريبوزيم موجه بالبروتين18,19. من بين هذه الآليات، برز ربط الحمض النووي الريبي كعامل حاسم محدد لظاهرة الخلايا الغضروفية وتوازن ECM. يضمن الربط الدقيق التعبير الصحيح عن البروتينات الهيكلية والإشارة الضرورية لسلامة الغضاريف، في حين يمكن أن يؤدي الربط الشاذ إلى اضطراب دوران ECM، وتعزيز المسارات الكاراتوليكية، وتسريع تدهور الغضروف 20,21,22.
سلطت الدراسات الحديثة الضوء على البروتينات التداخلية كمنظمات رئيسية لتوازن نسيج المفصل، ومع ذلك لا يزال دور هذه البروتينات في مسببات التهاب الفتحات الهوائيةغير مستكشف إلى حد كبير. على وجه الخصوص، يتحكم SNRNP70، وهو مكون أساسي في مركب الريبونوكليوبروتين النووي الصغير U1، التعرف على مواقع التوصيل 5′ أثناء معالجة ما قبل mRNA وبالتالي يؤثر على تضمين أو استبعاد الإكسونات المحددة24,25. تم ربط خلل تنظيم SNRNP70 بعدة حالات مرضية، لكن مساهمته في تدهور الغضروف لم يتم توصيفه مسبقا. أحد الأهداف المحتملة لتنظيم الالتصاق بالبليسوسوم هو كيناز الالتصاق البؤري (FAK)، وهو جزيء إشارات مركزي يدمج الإشارات الميكانيكية والكيميائية الحيوية للتحكم في التصاق الخلايا الغضروفية، وديناميكيات الخلايا الهيكلية، والبقاء، والتحويل الآلي. تم ربط زيادة نشاط FAK بزيادة إشارات الالتصاق البؤري، مما يعزز تخليق ECM وتنظيم البروتينات الرئيسية الخاصة بالغضاريف، بما في ذلك الأجريكان (ACAN) والكولاجين النوع الثاني ألفا 1 (COL2A1)27,28. هذه البروتينات ضرورية للحفاظ على بنية الغضروف ووظيفته، وانخفاض تنظيمها هو علامة مميزة لتقدم التهاب الفصول الدهنية.
على الرغم من التقدم في أبحاث النسخ والوراثة فوق الجينية في الحمض الدهوي، لا يزال دور تنظيم FAK الوسيط بالسبليسوسوم في التحكم في إشارات الالتصاق البؤري واستقلاب ECM غير محدد جيدا. استنادا إلى هذه الملاحظات، تم الاستدلال أن SNRNP70 يمكن أن يؤثر على سلوك الخلايا الغضروفية وتوازن ECM من خلال تعديل الربط البديل ل FAK وإشارات الالتصاق البؤري لاحقا. لاختبار هذه الفكرة، كان السؤال الأول هو ما إذا كان SNRNP70 التعبير يتغير في OA؛ تم تقييم إمكاناته كمؤشر تشخيصي، وتم استكشاف روابطه المحتملة بالاستجابات الالتهابية والمسارات المرتبطة بالالتصاق البؤري في الخلايا الغضروفية.
البروتوكول
تمت الموافقة على بروتوكول دراسة الحيوانات من قبل لجنة الأخلاقيات في جامعة قوانغشي الطبية ومستشفى جامعة قوانغشي الطبية الأول (رمز البروتوكول 202109001، رقم 2022-KY-E-252).
تحذير: يجب أن تتبع جميع الإجراءات إرشادات رعاية الحيوانات المؤسسية والوطنية. يجب على الأفراد المدربين ارتداء معدات الحماية الشخصية (قفازات، أقنعة، معاطف مختبر) عند التعامل مع الحيوانات أو العينات. تتطلب العمليات الجراحية تخديرا كافيا ومراقبة ما بعد العملية. أبلغ عن الأحداث السلبية (نزيف، عدوى، تغيرات سلوكية) بسرعة. تخلص من الجثث والمواد الملوثة بشكل صحيح. إجراء تفتيش منتظم للمنشآت لضمان الامتثال. التفاصيل التجارية للحيوانات والكواشف والمعدات المستخدمة في هذه الدراسة مدرجة في جدول المواد.
مجموعات بيانات المرضى والتعبير الجيني
لدراسة أنماط تعبير SNRNP70 في التبضع البصري، تم استرجاع مجموعات بيانات تسلسل الحمض النووي الريبي (RNA-seq) والمصفوفات الدقيقة المتاحة للجمهور بشكل منهجي من قاعدة بيانات التعبير الجيني الشاملة (GEO) (https://www.ncbi.nlm.nih.gov/geo/)21. تضمنت استراتيجية البحث الكلمات المفتاحية التالية: "SNRNP70 أو RPU1 أو Snp1 أو U1AP أو U170K أو U1RNP أو RNPU1Z أو SNRP70 أو U1-70K" مع "OA". تم تعريف معايير الإدراج كما يلي: (1) مجموعات بيانات مشتقة من عينات بشرية؛ (2) دراسات تركز بشكل خاص على التهاب المفاصل الروماتويدي مع استبعاد التهاب المفاصل الروماتويدي وأمراض المفاصل الالتهابية الأخرى؛ (3) توفر ما لا يقل عن ثلاث نسخ بيولوجية مستقلة في كل من مجموعتي OA والمجموعة الضابطة الطبيعية (NC)، مما يمكن من حساب الفروق المتوسطة الموحدة (SMD). سير عمل معالجة البيانات: بعد تحديد مجموعات البيانات المؤهلة، تم تنزيل بيانات التعبير الخام والبيانات الوصفية السريرية المصاحبة. بالنسبة لمجموعات بيانات المصفوفات الدقيقة، تم تطبيع بيانات مستوى المجسات باستخدام خوارزمية متوسط المصفوفات المتعددة المتقوية (RMA)، وتم تعليق المجسات على رموز جينية رسمية باستخدام ملفات التعليقات التوضيحية على المنصة. بالنسبة لمجموعات بيانات RNA-seq، تم تحويل الأعداد الخام إلى قيم النسخ لكل مليون (TPM)، ثم تحويلها إلى log2 لضمان المقارنة عبر مجموعات البيانات. عندما تم تعيين عدة مجسات إلى نفس الجين، تم الاحتفاظ بالمجس صاحب أعلى تباين في التعبير عبر العينات. مراقبة الجودة والتوحيد: لتقليل تأثيرات الدفعات عبر دراسات مختلفة، تم تطبيق دالة ComBat من حزمة "sva" R. تم إجراء تحليل المكونات الرئيسية (PCA) قبل وبعد التصحيح لتقييم فعالية إزالة تأثير الدفعة. تم استبعاد مجموعات البيانات التي أظهرت جودة ضعيفة، أو تعليقات غير مكتملة، أو فشلت في التمييز بين مجموعات OA وNC من التحليل الإضافي.
تحديد SNRNP70 المعبر عنها بشكل مختلف في الفتحات الصبغية العظمية وأنسجة الغضروف الطبيعية
لتقييم التعبير التفاضلي عن SNRNP70 بين الأنسجة المجرمية الصبغية وأنسجة الغضروف الطبيعية (NC)، تم استخدام نهج تحليلي متعدد الخطوات. أولا، تم استخراج بيانات التعبيرات الخاصة ب SNRNP70 من مجموعات البيانات المتاحة. تم إجراء مقارنات إحصائية بين مجموعات OA وNC باستخدام اختبار t للطالب لتحديد ما إذا كانت مستويات التعبير المتوسطة تختلف بشكل ملحوظ. لتقييم القوة التمييزية ل SNRNP70 بشكل أفضل، تم توليد منحنيات خصائص تشغيل المستقبل (ROC) باستخدام GraphPad Prism 8.0 ومنصة Sangerbox (http://vip.sangerbox.com/). تم حساب المساحة تحت المنحنى (AUC) لقياس الكفاءة التشخيصية لمستويات التعبير SNRNP70 .
بعد ذلك، تم إجراء تحليل تلوي باستخدام Stata 14.0 لدمج النتائج عبر مجموعات بيانات متعددة. تم تقييم التباين الإحصائي باستخدام اختبار كوكران Q وإحصائية I2 . عندما كان التباين منخفضا (p > 0.01 وI2 < 50٪)، تم تطبيق نموذج التأثيرات الثابتة؛ وإلا، تم اعتماد نموذج التأثيرات العشوائية. تم حساب الفرق المتوسط المعياري (SMD) مع فترة الثقة 95٪ (CI) لقياس تعبير SNRNP70 التفاضلي بين أنسجة الالتهاب المفاصل وNC. لأجل دقة التشخيص، تم إجراء تحليل تلوي تشخيصي باستخدام وحدة ميداس في ستاتا. قدر هذا التحليل الحساسية المجمعة، والنوعية، ونسبة الاحتمالية الإيجابية (PLR)، ونسبة الاحتمالية السلبية (NLR)، ونسبة احتمالات التشخيص (DOR) ل SNRNP70. بالإضافة إلى ذلك، تم إنشاء منحنى ملخص لخصائص تشغيل المستقبل (sROC) لتوفير تقييم شامل لأداء التشخيص. وأخيرا، أجريت تحليلات الحساسية عن طريق استبعاد مجموعات البيانات الفردية بشكل متسلسل لتقييم متانة واستقرار النتائج المجمعة. تم تقييم التحيز المحتمل للنشر باستخدام اختبار عدم تماثل مخطط القمع الذي أطلقه ديكس. باستخدام هذا الإطار التحليلي المتكامل، تم تقييم أنماط التعبير والإمكانات التشخيصية SNRNP70 في أنسجة التهاب المفاصل الدهسي مقارنة بأنسجة NC بشكل منهجي.
عزل الخلايا والزراعة
تم عزل الخلايا الغضروفية الأولية من الغضروف المفصلي لفئران سبراج-داولي في اليوم الثاني بعد الولادة. تم استخدام ما مجموعه ستة فئران حديثة الولادة في كل عزلة. وبما أن الحيوانات جمعت في مرحلة مبكرة بعد الولادة، لم يتم تحديد الجنس. لكل تحضير خلوي مستقل، تم جمع أنسجة الغضروف من جميع الفئران الستة وتجميعها قبل الزرعة. كل تحضير غضروفية معزول بشكل مستقل—مشتق من مجموعة منفصلة من الحيوانات—كان يعامل كنسخة بيولوجية واحدة. لم تعتبر النسخ التقنية، بما في ذلك الآبار المتكررة أو تفاعلات qRT-PCR المتكررة من نفس تحضير الخلية، نسخا بيولوجية مستقلة.
باختصار، تم إعدام الفئران حديثة الولادة في ظروف معقمة، وتم تشريح مفاصل الركبة لكشف الغضروف المفصلي. تم فصل نسيج الغضروف بعناية عن العظم تحت الغضروجي باستخدام مقص جراحي دقيق، وقطعه إلى شظايا بحجم يقارب 1 مم³، ثم هضم بشكل متسلسل باستخدام الإنزيمات. تم حضن شظايا الأنسجة أولا بجرعة 0.25٪ من تريبسين–EDTA لمدة 30 دقيقة عند 37 درجة مئوية لإزالة الأنسجة الضامة المتبقية. بعد الغسل بمحلول ملحي مخزن بالفوسفات، تم هضم الشظايا المتبقية باستخدام كولاجناز 0.2٪ من النوع الثاني في DMEM خالي من المصل لمدة 4–6 ساعات عند 37 درجة مئوية مع تحريك خفيف. تم ترشيح تعليق الخلية الناتج عبر مصفاة خلوية بحجم 70 ميكرومتر، وتم طرد مركزه بحرارة 300 × جرام لمدة 5 دقائق، وأعيد تعليقه في DMEM كامل مع إضافة 10٪ مصل بقري جنيني، و100 U/mL بنسلين، و100 ميكروغرام/مل ستربتومايسين. تم زرع الخلايا في قوارير الزراعة والحفاظ عليها عند 37 درجة مئوية في حاضنة رطبة بنسبة 5٪ CO. كان الوسيط يغير كل يومين إلى ثلاثة أيام. تم استخدام الخلايا الغضروفية في الممر 1 أو 2 فقط في التجارب اللاحقة لتقليل عدم التمايز.
تم تأكيد هوية ونقاء الخلايا الغضروفية قبل الاستخدام التجريبي. من الناحية الشكلية، أظهرت الخلايا الأولية مظهرا نموذجيا لخلايا غضروفية متعددة الأضلاع أو يشبه الحصى تحت مجهر التباين الطوري. على المستوى الجزيئي، تم التحقق من هوية الخلايا الغضروفية من خلال التعبير عن علامات مرتبطة بالغضروف، بما في ذلك COL2A1 وACAN، باستخدام نقطة غربية. في نموذج الالتهاب في المختبر ، تم تحفيز الخلايا الغضروفية الأولية باستخدام إنترلوكين-1β مؤتلف للفئران (IL-1β) عند 10 نانوغرام/مل لمدة 48 ساعة. كانت الخلايا غير المعالجة التي زرعت تحت ظروف متطابقة تشكل المجموعة الضابطة الطبيعية. في تجارب SNRNP70 التعبيرية الزائدة، تم نقل الخلايا الغضروفية من التحضيرات البيولوجية المستقلة بشكل منفصل، وتمت معالجة كل نسخة بيولوجية بشكل مستقل خلال عملية النقل، وتحفيز IL-1β، واستخراج الحمض النووي الريبي/البروتين، والتحليل الإحصائي.
PCR الكمي في الوقت الحقيقي (qRT-PCR)
تم عزل إجمالي الحمض النووي الريبي من مزارع غضروفية تحت متلاصقة (~80٪ تلاصق) باستخدام مجموعة RNAfast200. تم تقييم نقاء الحمض النووي الريبي على جهاز NanoDrop 2000، حيث قبلت فقط عينات بنسبة A260/280 بين 1.8–2.0، وتم تأكيد السلامة بواسطة الرحلان الكهربائي الهلامي للأغاروز بنسبة 1٪. تم نسخ cDNA للسلسلة الأولى من 1 ميكروغرام من إجمالي RNA باستخدام مجموعة qPCR RT في تفاعل بحجم 20 ميكرولتر يحتوي على بادئات عشوائية وdNTPs. كان الملف الحراري للنسخ العكسي 42 درجة مئوية لمدة 30 دقيقة، تليها 95 درجة مئوية لمدة 5 دقائق. تم إجراء qPCR باستخدام خلط مسبقي قائم على SYBR Green على نظام PCR في الوقت الحقيقي. كل تفاعل بسعة 20 ميكرولتر يتكون من 10 ميكرولتر من خليط SYBR Green Master، و0.5 ميكرولتر لكل من البرايمر الأمامي والعكسي (10 ميكرومتر)، و2 ميكرولتر cDNA، و7 ميكرولتر ماء خال من النوكلياز. كانت ظروف الدراجة: 95 درجة مئوية لمدة 30 ثانية، ثم 40 دورة بدرجة حرارة 95 درجة مئوية لمدة 5 ثوان و60 درجة مئوية لمدة 30 ثانية. تم إجراء تحليل منحنى الصهر بعد التضخيم للتحقق من خصوصية المنتج الواحد. خدم GAPDH كمرجع داخلي، وتم حساب التعبير النسبي بطريقة 2−ΔΔCt . تم إجراء التفاعلات بثلاث نسخ مع ثلاثة نسخ بيولوجية مستقلة. تم سرد تسلسلات البادئات في الجدول 1.
البقعة الغربية
تم تقييم تعبير البروتين ل ACAN وCOL2A1 وMMP13 في الخلايا الغضروفية بعد علاج IL-1β وزيادة SNRNP70 التعبير. تم غسل الخلايا مرتين باستخدام محلول ملحي مخزن بالفوسفات البارد (PBS) وتحلل في مخزن RIPA يحتوي على مثبطات للبروتياز والفوسفاتاز. تم حضن الليزاتات على الجليد لمدة 30 دقيقة مع دوامة دورية، ثم تم طرد مركزها عند 12,000 × جرام لمدة 15 دقيقة عند 4 درجات مئوية. تم تحديد تركيزات البروتين في المواد الفائقة التي تم تطهيرها باستخدام مجموعة BCA. تم فصل كميات متساوية من البروتين (30 ميكروغرام لكل مسار) بواسطة 10٪ SDS-PAGE ونقلها إلى أغشية PVDF عن طريق النقل الرطب. تم حجب الأغشية بحليب خالي من الدسم بنسبة 5٪ في TBST في درجة حرارة الغرفة لمدة ساعة واحدة، ثم تم فحصها طوال الليل عند 4 درجات مئوية باستخدام الأجسام المضادة الأولية ضد ACAN (1:1000)، COL2A1 (1:1000)، أو MMP13 (1:1000). بعد ثلاث غسلات TBST (كل منها 10 دقائق)، تم حضن الأغشية بأجسام مضادة ثانوية متقاربة ب HRP (1:5000) لمدة ساعة واحدة في درجة حرارة الغرفة. تم تطوير الإشارة باستخدام كاشف ECL وتم التقاطها على نظام ChemiDoc XRS+. تم إجراء قياس كثافة الشريط باستخدام ImageJ، وتم تطبيع جميع إشارات البروتين المستهدف إلى GAPDH كضابط تحميل. تعرض البيانات كمستويات نسبية للبروتين مقارنة بمجموعة الضابطة.
النقل المتبادل
تم نقل الخلايا الغضروفية ببلازميد SNRNP70 مفرط التعبير (oe-SNRNP70) بمجرد وصول الثقافات إلى حوالي 80٪ من التقاء العلاقات. للنقل، تم زرع الخلايا في صفائح ذات 6 آبار بحجم 2 × 10⁵ لكل بئر وتركت لتلصق طوال الليل في وسط نمو قياسي (DMEM مع 10٪ مصل أبقار جنيني و1٪ بنسلين/ستريبتومايسين) عند 37 درجة مئوية في 5٪ CO₂. تم إجراء عمليات النقل باستخدام LipoFiter 3.0 وفقا لتعليمات الشركة المصنعة. باختصار، تم تخفيف 2–3 ميكروغرام من حمض البلازميد النووي لكل بئر في 100 ميكرولتر من وسط خال من المصل وخلط مع كمية مناسبة من مادة الدهون. تم حضن مركبات الحمض النووي والدهون لمدة 15–20 دقيقة في درجة حرارة الغرفة للسماح بتكوين المركبات، ثم أضيفت بلطف إلى كل بئر يحتوي على الخلايا الغضروفية في وسط طازج خال من المصل. بعد 6 ساعات، تم استبدال الوسط بوسط نمو كامل لتقليل السمية الخلوية.
تم تقييم كفاءة النقل والتعبير SNRNP70 بعد 48–72 ساعة من النقل. تم قياس مستويات SNRNP70 mRNA بواسطة PCR الكمي في الوقت الحقيقي (qRT-PCR)، مع GAPDH كعنصر تحكم داخلي. تم تقييم تعبير البروتين باستخدام نظام Western Blot الآلي البسيط وفقا لبروتوكول الشركة المصنعة. باختصار، تم تحضير محللات الخلايا، وقياس تركيزات البروتين، وتحميل العينات على خراطيش الشعيرات الدموية للفصل الآلي والكشف المناعي باستخدام الأجسام المضادة المضادة SNRNP70. تم حساب كفاءة النقل من خلال مقارنة التعبير SNRNP70 في الخلايا المنقولة ب oe-SNRNP70 وذلك في الخلايا الضابطة التي تم نقلها بواسطة الناقل الفارغ.
التألق المناعي
تم استخدام التألق المناعي لفحص مستويات بروتينات IL-6 و MMP-13 في الخلايا الغضروفية OE-SNRNP70 بعد تحفيز IL-1β. لفترة وجيزة، تم زرع الخلايا على ألواح زجاجية معقمة في صفائح بئر 24 وزرعت تحت ظروف قياسية حتى وصلت إلى التقاء بنسبة 70–80٪. ثم تم تثبيتها بمادة بارافورمالديهايد بنسبة 4٪ لمدة 15 دقيقة في درجة حرارة الغرفة وغسلها ثلاث مرات باستخدام PBS. للنفاذية، تم تطبيق 0.1٪ ترايتون X-100 في PBS لمدة 10 دقائق في درجة حرارة الغرفة. تم حجب مواقع الارتباط غير المحددة عن طريق حضان الخلايا في ألبومين مصل البقري بنسبة 5٪ (BSA) في PBS لمدة ساعة في درجة حرارة الغرفة.
بعد الحجب، تم حضن الخلايا طوال الليل عند 4 درجات مئوية مع الأجسام المضادة الأولية ضد IL-6 و MMP-13 (مخففة بنسبة 1:200 في 1٪ BSA/PBS). بعد ثلاث غسلات باستخدام PBS لإزالة الأجسام المضادة الأولية غير المربوطة، تم حضن الخلايا بأجسام مضادة ثانوية متقاربة بالفلوروفور الخاصة بالنوع (مخففة بنسبة 1:500) لمدة ساعة واحدة في درجة حرارة الغرفة في الظلام. تم صبغ النوى بمادة 4′,6-دياميدينو-2-فينيليندول (DAPI) لمدة 5 دقائق. تم تركيب أغطية الألواح على شرائح زجاجية مع وسط تثبيت مضاد للتلاشي، وتم التقاط صور الفلورة باستخدام مجهر فلوري بتكبير 20×. للتحليل الكمي، تم تحليل 10 خلايا مختارة عشوائيا لكل عينة في ImageJ لقياس شدة التألق للبروتينات المستهدفة. تم حساب متوسط شدة الفلورة لكل مجموعة واستخدم في المقارنة الإحصائية.
اختبار إغلاق الجرح بخدش الخلية
تم إجراء اختبار إغلاق الجرح بالخدوش لتقييم قدرة الخلايا الغضروفية على سد فجوة جرح صناعية تحت ظروف علاجية مختلفة. تم زرع الخلايا الغضروفية الأولية في صفائح ذات 6 آبار بكثافة 1 ×10 إلى 5 خلايا في كل بئر وزرعت حتى تم الوصول إلى حوالي 90٪ من التقاء العلاقات. تم توليد خدش خطي في طبقة الخلية الأحادية باستخدام رأس ماصة معقم بسعة 200 ميكرولتر. تمت إزالة الخلايا المفصولة بغسلها مرتين باستخدام PBS، ثم أضيف وسط زراعة كامل جديد يحتوي على المعالجات الموجهة. تم توزيع الخلايا على المجموعات التالية: المجموعة الضابطة الطبيعية، المعالجة ب IL-1β، وIL-1β بالإضافة إلى SNRNP70 زيادة التعبير. تم التقاط صور لنفس منطقة الجرح عند نقاط زمنية بعد 6 ساعات و12 ساعة بعد الخدش باستخدام مجهر مقلوب (الشكل الإضافي 1). تم حساب إغلاق الجرح كنسبة الانخفاض في مساحة الجرح مقارنة بمنطقة الجرح الأولية عند 0 ساعة باستخدام الصيغة التالية:
إغلاق الجرح (٪) = [(منطقة الجرح عند 0 ساعة - منطقة الجرح عند النقطة الزمنية المشار إليها) / منطقة الجرح عند 0 ساعة] × 100. (1)
التحليل الإحصائي
تعرض جميع البيانات الكمية كمتوسط ± انحراف معياري (SD) من ثلاث نسخ بيولوجية مستقلة (n = 3) ما لم يذكر خلاف ذلك. تم إجراء تحليلات إحصائية باستخدام GraphPad Prism 8.0. للمقارنات بين مجموعتين، تم استخدام اختبار t للطالب غير المزدوج. تم الإشارة إلى الدلالة الإحصائية كما يلي: *p < 0.05 و **p < 0.01.
النتائج
SNRNP70 التعبير في أنسجة التجويف المفصلي
للتحقيق بشكل شامل في دور SNRNP70 في التمهيد البصري، تم إجراء فحص منهجي ل 10 مجموعات بيانات RNA-seq وميكروآراي متاحة للجمهور والتي استوفت معايير صارمة للإدراج والاستبعاد (الجدول 2). تم استخراج مستويات التعبير SNRNP70 وتحليلها بعناية عبر هذه المجموعات. ومن اللافت للنظر، في 6 من أصل 10 مجموعات، كان التعبير SNRNP70 منخفضا بشكل ملحوظ في أنسجة الانسداد الدهري مقارنة بالمجموعة الضابطة الطبيعية (p < 0.05)، مما يشير إلى نمط ثابت من كبت النسخ (الشكل 1).
ومن الجدير بالذكر أن ثلاث مجموعات بيانات (GSE114007، GSE169077، و GSE19060) لم تكشف عن فروق ذات دلالة إحصائية كبيرة بين عينات OA وعينات التحكم. بدلا من تجاهل هذه التناقضات، تم الاستفادة من استراتيجيات تصحيح الدفعات ودمج مجموعات البيانات لتعزيز متانة وموثوقية التحليل. على وجه التحديد، تم دمج مجموعات البيانات المستمدة من منصات تسلسل متطابقة لزيادة القوة الإحصائية. على سبيل المثال، تم دمج GSE114007 مع GSE89408 لتوليد GSE114007-89408، بينما تم دمج GSE169077 و GSE12021 و GSE55457 في GSE169077-12021-55457 (الشكل 1). قلل هذا النهج التكاملي من التباين بين الدراسات وعزز قابلية إعادة إنتاج النتائج. باختصار، تكشف تحليلات مجموعات البيانات البشرية عن انخفاض مستمر في تنظيم SNRNP70 في أنسجة المفصلية في الفتحات الفوضوية، مما يشير إلى إمكاناته كمؤشر حيوي تشخيصي. ومع ذلك، ما إذا كان هذا الانخفاض يؤدي مباشرة إلى اختلال تنظيم الربط أو تدهور الغضروف لدى البشر غير واضح وينتظر التحقق، ويفضل أن يكون ذلك في نماذج الأنسجة البشرية.
القدرة التشخيصية السريرية SNRNP70
لتقييم القيمة التشخيصية الدقيقة ل SNRNP70 في الفصول الدهنية، تم إجراء تحليل تلوي شامل دمج بيانات من 165 عينة من التهاب الخصيم و125 ضابطا طبيعيا. يمثل، حسب أفضل المعرفة المتاحة، التقييم المنهجي ل SNRNP70 كمؤشر حيوي تشخيصي محتمل في الحمض الفصيلي. كشف تحليل التغاير عن تباين كبير عبر مجموعات البيانات (I2 = 72.9٪؛ p = 0.001)، مما يستلزم نموذج التأثيرات العشوائية. أظهر التحليل المجمع انخفاضا قويا ومتسقا في تعبير SNRNP70 في أنسجة التهاب المفاصل الدهني مقارنة بالمجموعات الطبيعية، مع فرق متوسط معياري (SMD) قدره -1.07 (فاصل الثقة 95٪: -1.34 إلى -0.80) (الشكل 2A–B). بعيدا عن تحليل التعبير، تم تقييم أداء التشخيص SNRNP70 بشكل أكبر. كشفت نتائج الاختبارات التشخيصية المجمعة عن حساسية مجتمعة بلغت 0.82 (فترة الثقة 95٪: 0.57–0.94) ونوعية تبلغ 0.88 (فترة الثقة 95٪: 0.73–0.95)، مما يبرز قدرتها التمييزية القوية (الشكل 3A). بشكل ثابت، أعطى منحنى خاصية تشغيل المستقبل الملخص (SROC) مساحة تحت المنحنى (AUC) تبلغ 0.92 (فاصل الثقة 95٪: 0.90–0.94)، مما يبرز الدقة العالية لل SNRNP70 في التمييز بين مرضى التهاب المفعول عن الأفراد الأصحاء (الشكل 3B).
لضمان متانة هذه النتائج، تم إجراء تحليل للحساسية، مؤكدا أن الاستبعاد المتسلسل لمجموعات البيانات الفردية لم يغير بشكل جوهري حجم التأثير الكلي (الشكل 4A). ومن المهم أن اختبار عدم تماثل مخطط القمع لديك (p = 0.41) واختبار إيغر أظهرا عدم وجود تحيز كبير في النشر، مما عزز مصداقية النتائج (الشكل 4B). تظهر هذه البيانات معا أن SNRNP70 التعبير ينخفض في الفتحات البصرية وتشير إلى أنه يمكن أن يكون علامة حيوية تشخيصية. ومع ذلك، فإن التباين بين مجموعات البيانات وغياب مجموعة تحقق مستقلة يستدعي الحذر. لذلك تعتبر هذه النتائج أولية، بانتظار المزيد من الدراسات لتوضيح الفائدة السريرية ل SNRNP70 في تشخيص وإدارة التهاب العين الدهني.
SNRNP70 تعديل التعبير الجيني الالتهابي في الحمض النووي
لتحديد الدور التنظيمي ل SNRNP70 في الإشارات الالتهابية أثناء تقدم الالتهاب الدهني، تم إنشاء نموذج OA في المختبر من خلال تعريض الخلايا الغضروفية ل IL-1β، وهو سيتوكين مضاد للالتهابات مميز جيدا. كشف تحليل qRT-PCR بعد 48 ساعة من تحفيز IL-1β عن انخفاض كبير في مستويات SNRNP70 mRNA مقارنة بمجموعة NC (الشكل 5). كان هذا القمع للتعبير SNRNP70 في الظروف الالتهابية متوافقا مع بيانات النسخ النصي من مجموعات بيانات التهاب المفعول المفتوح المتاحة للجمهور، مما وفر دليلا قويا على أن SNRNP70 يكبت باستمرار في الالتهاب المرتبط بالتهاب الفتحات الصبغية. ولدراسة المزيد مما إذا كان استعادة التعبير SNRNP70 يمكن أن تعدل النمط الالتهابي للخلايا الغضروفية، تم نقل الخلايا باستخدام بلازميد SNRNP70 مفرط التعبير (oe-SN). ومن اللافت أن التعبير المفروض SNRNP70 خفف بشكل كبير من الالتهاب الناتج عن IL-1β، كما ينعكس في التغيرات النسخية والترجمية. على وجه التحديد، أظهر qRT-PCR انخفاضا قويا في مستويات mRNA من IL-6 وMMP-13 في مجموعة oe-SN مقارنة بالضوابط المعالجين المعالجين ب IL-1β (الشكل 5).
بالإضافة إلى هذه النتائج الجزيئية، قدم التلوين المناعي الفلوري دليلا خلويا مباشرا على قدرة SNRNP70 المضادة للالتهابات. في الخلايا المعالجة ب IL-1β، أظهر IL-6 تراكما سيتوبلازمي واضحا، مما يتوافق مع حالة التهابية نشطة. ومن اللافت أن الإفراط في التعبير عن SNRNP70 أدى إلى ضعف ملحوظ في شدة تلوين السيتوبلازم IL-6 (الشكل 6A)، مما يبرز قدرته على عكس الاستجابة الالتهابية على المستوى الخلوي. لوحظ نمط مشابه مع MMP-13، حيث عزز علاج IL-1β تعبيره، لكن SNRNP70 الإفراط في التعبير قلل بشكل ملحوظ من تحديد موقع MMP-13 وشدة الإشارة (الشكل 6B).
على عكس التحقيقات السابقة التي ركزت بشكل رئيسي على تلف الغضاريف الهيكلي، تشير بيانات الغضروفيات الغضروفية في الفئران إلى أن SNRNP70 يعمل كمنظم للتعبير الجيني الالتهابي. تحديدا، تم فرض التعبير SNRNP70 الوسطاء الالتهابيين المدفوعين ب IL-1β، بما في ذلك IL-6 وMMP-13، في هذا النموذج للفئران. ومن المهم أن هذه التجارب أجريت حصريا في نموذج الجرذان الالتهابي، فهي لا تعيد بشكل مباشر نتائج مجموعة البيانات البشرية. ومع ذلك، توفر هذه النتائج إطارا مفاهيميا يشير إلى أن SNRNP70 قد لا يعمل فقط كعامل ربط بل أيضا كعامل محتمل للالتهاب—وهو احتمال يستحق المزيد من الاستكشاف في الأنسجة البشرية.
تحديد المسارات المرتبطة ب SNRNP70 في التفوق الوظيفي
لاستكشاف المسارات البيولوجية المرتبطة بالتعبير SNRNP70 في التهاب المفاصل العظمي، تم إجراء تحليل الارتباط بيرسون بشكل منفصل في مجموعات بيانات النسخ العامة GSE98918 و GSE117999 و GSE129147 و GSE51588 و GSE169077_12021_55457 و GSE114007-89408 و GSE82107-19060. تم اعتبار الجينات ذات معامل الارتباط المطلق (|r|) > 0.8 و p < 0.05 مرتبطة بشكل كبير بتعبير SNRNP70 في كل مجموعة بيانات. تم توليد اتحاد الجينات المترابطة عبر جميع مجموعات البيانات، مما أدى إلى 929 جينا مرتبطا ب SNRNP70.
تم إجراء تحليل إثراء مسار KEGG لاحقا باستخدام حزمة clusterProfiler، مع تعديلات لاختبارات متعددة باستخدام طريقة Benjamini–Hochberg. كشف هذا التحليل عن إثراء كبير للجينات المحددة في عدة مسارات، بما في ذلك مسار الالتصاق البؤري (الشكل 7). يعرف هذا التسلسل الإشارة بتنظيم التصاق الخلايا الغضروفية، والتحويل الميكانيكي، وإعادة تشكيل ECM، وكلها عمليات رئيسية في تقدم التوتمي. تشير هذه النتائج معا إلى وجود صلة بين تعبير SNRNP70 وتوقيعات التعبير الجيني المرتبطة بالالتصاق البؤري في مجموعات بيانات الحمض العضوي.
SNRNP70 يتوسط إصلاح الخلايا الغضروفية الالتهابية عبر مسار الالتصاق البؤري
لتقييم دور SNRNP70 في قدرة الخلايا الغضروفية الالتهابية على شفاء الجروح، تم إجراء اختبار إغلاق الجرح باستخدام الخلايا الغضروفية الأولية. تم توزيع الخلايا إلى ثلاث مجموعات: ضابطة طبيعية، معالجة ب IL-1β، وIL-1β بالإضافة إلى SNRNP70 زيادة في التعبير. أدى تحفيز IL-1β إلى تقليل مدى إغلاق الفجوة الخدشية مقارنة بالمجموعة الضابطة الطبيعية، مما يشير إلى ضعف القدرة على شفاء الجروح في الحالات الالتهابية. على النقيض من ذلك، أدى SNRNP70 التعبير الزائد إلى إغلاق فجوة الخدش في الخلايا الغضروفية المعالجة ب IL-1β مقارنة بمعالجة IL-1β وحده (الشكل 8A). تشير هذه النتائج مجتمعة إلى أن SNRNP70 التعبير الزائد يعزز استجابة إغلاق الجرح للغضروفية المعالجة ب IL-1β.
على المستوى الجزيئي، أظهرت تحليلات البقعة الغربية أن معالجة IL-1β تثبط تعبير بروتينات مصفوفة الغضاريف ACAN وCOL2A1، مع تعزيز تنظيم إنزيم MMP13 المتحلل. ومن المهم أن SNRNP70 التعبير الزائد لم يعيد فقط مستويات ACAN وCOL2A1، بل خفض أيضا بشكل كبير MMP13، مما حافظ على سلامة ECM (الشكل 8B). ميكانيكيا، في المختبر، كانت التأثيرات المفيدة SNRNP70 مرتبطة ارتباطا وثيقا بتنشيط مسار الالتصاق البؤري.
تكشف تحليلات مجموعات البيانات البشرية مجتمعة أن SNRNP70 يتم تنظيمه بشكل أقل في الأكسيوم البصري وأن تعبيره يرتبط بالجينات المشاركة في مسار الالتصاق البؤري. في الخلايا الغضروفية في الفئران المعرضة لتحفيز IL-1β، يعزز التعبير القسري SNRNP70 إصلاح الخلايا الالتهابية وتخليق ECM، ويرتبط أيضا بإشارات الالتصاق البؤري. على الرغم من أن هذه الملاحظات المخبرية من نموذج الفئران تشير إلى ذلك، إلا أنها لا تؤكد بشكل مباشر النتائج المستمدة من مجموعات بيانات بشرية. ومع ذلك، تدعم هذه الخطوط المتقاربة من الأدلة نموذجا يساهم فيه SNRNP70 في تكوين أمراض الفتحات البصرية البشرية عبر إشارات الالتصاق البؤري — وهي فرضية تنتظر الآن تأكيدا نهائيا في الأنسجة البشرية أو نماذج في الجسم الحي ذات الصلة البشرية.
توفر البيانات:
مجموعات البيانات المستخدمة والمحللة في هذه الدراسة متاحة من مجموعة بيانات GEO (https://www.ncbi.nlm.nih.gov/geo/). جميع البيانات التي تم إنتاجها أو تحليلها خلال هذه الدراسة تم تقديمها ومناقشتها بالكامل داخل المخطوطة. يتم رفع البيانات الخام لهذه الدراسة كملف إضافي.
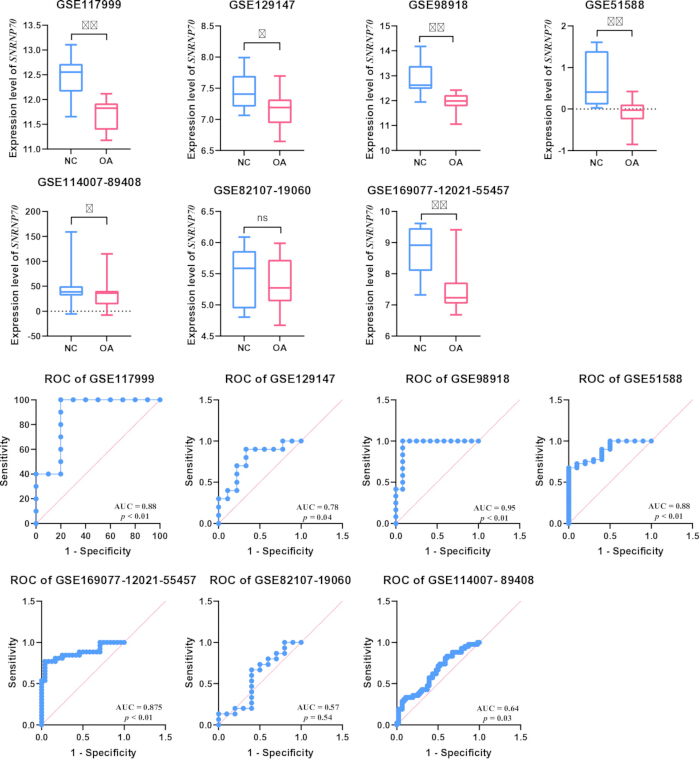
الشكل 1: اختبار t ومنحنى ROC للطلاب لسبع دراسات. أشارت النتائج إلى أن التعبير SNRNP70 كان أقل في أنسجة التهاب المفاصل الدهني مقارنة بأنسجة NC في GSE117999، GSE129147، GSE98918، GSE51558، GSE114007-89408، و GSE169077-12021-55457 (p < 0.05)، وأشارت AUC إلى جدوى عالية. p < 0.05 (*)، p < 0.01(**). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
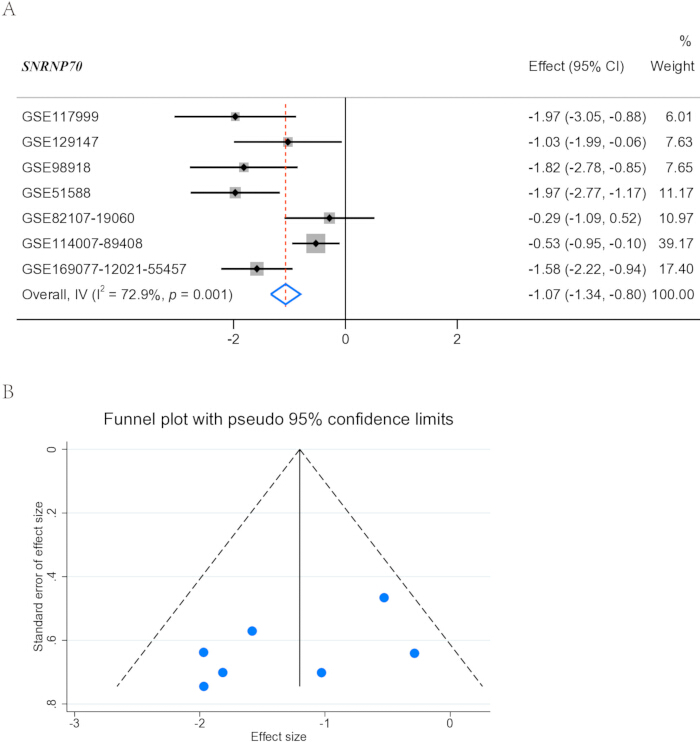
الشكل 2: التحليل التلوي لسبع مجموعات بيانات. (أ) أظهرت النتائج أن I2 = 72.9٪، p = 0.001، وSMD الكلي كان -1.07. (ب) تم تقييم مخطط القمع للكشف عن تحيز النشر في التحليل التلوي. وجد أنه متماثل في الأساس. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
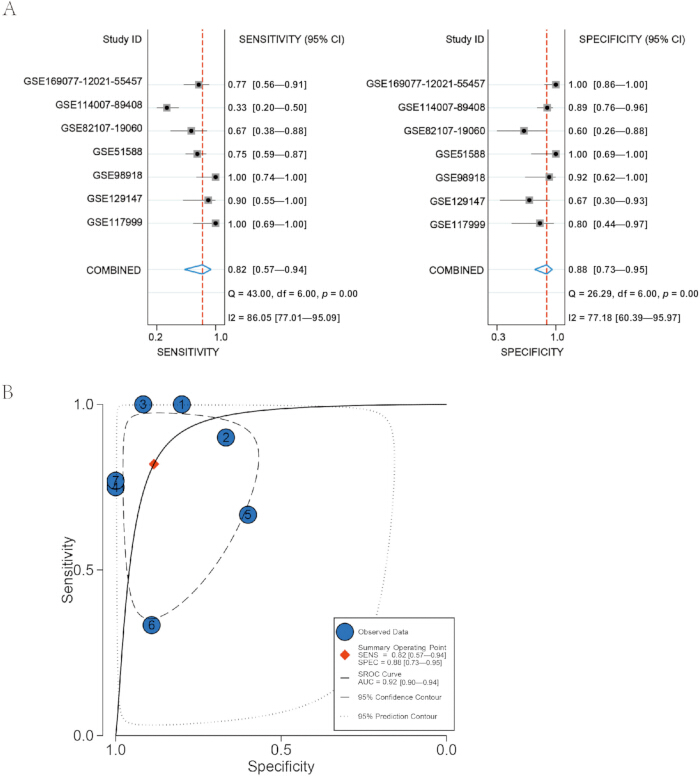
الشكل 3: أداء التشخيص في SNRNP70. (أ) كشف اختبار Q أن كل من الحساسية والنوعية لهما قيم p < 0.05، مع قيم I2 بنسبة 86.05٪ و77.18٪ على التوالي، مما يشير إلى تباين كبير. أبلغت الدراسة عن حساسية بلغت 0.82 وخصوصية 0.88، مما يبرز أدائها الملحوظ. (ب) كان AUC لمؤشر sROC 0.92، مما يشير إلى مستوى عال من الثقة في البحث. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
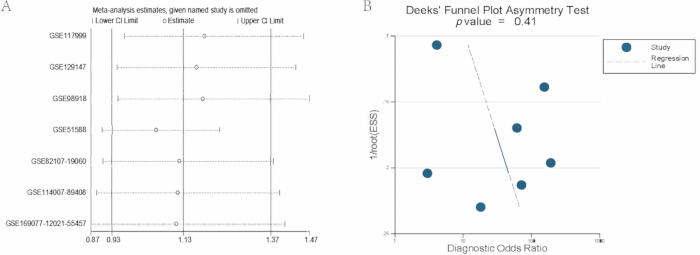
الشكل 4: تحليل التأثير ومخطط قمع ديك. (أ) أشار تحليل التأثير إلى أن استبعاد أي دراسة فردية لم يؤثر بشكل ملحوظ على النتائج العامة. (ب) عبر سبع دراسات، أظهرت جميع النتائج عدم وجود تحيز ذي دلالة (p = 0.41). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
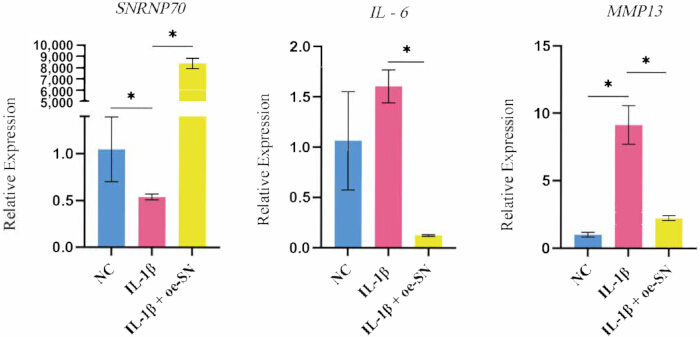
الشكل 5: تشير نتائج qRT-PCR إلى انخفاض كبير في التعبير SNRNP70 في الخلايا الغضروفية بعد علاج IL-1β. في مجموعة oe-SN، كان هناك انخفاض ملحوظ في مستويات تعبير المؤشرات الالتهابية IL-6 وMMP13 مقارنة بمجموعة IL-1، مما يشير إلى أن الإفراط في التعبير عن SNRNP70 يمكن أن يعكس العلامات الالتهابية في الخلايا الغضروفية التي عولجت ب IL-1β. تعرض البيانات كمتوسط ± SD من n = 3 نسخ بيولوجية مستقلة. قيم p < 0.05 (*)، وقيم p < 0.01(**). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
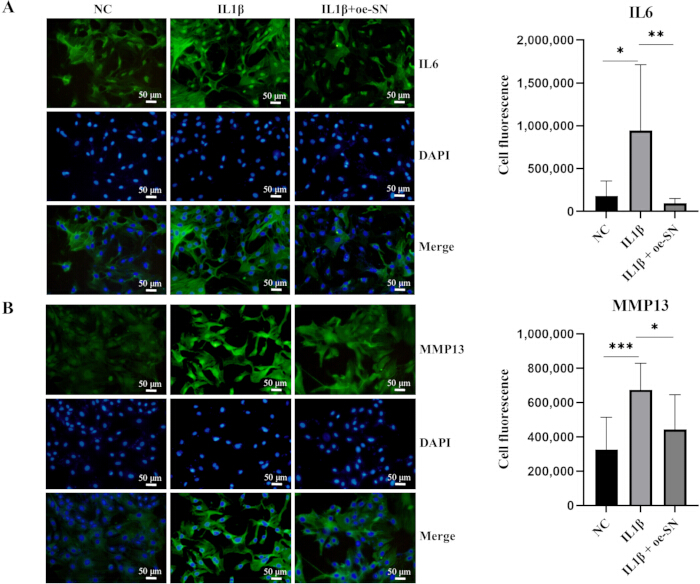
الشكل 6: تحليل IF لخلايا الغضروط المعالجة ب IL-1β بعد معالجة IL-1β، موضحا شدة الفلورة. (أ) زادت شدة الفلورة في IL-6 و(ب) MMP13 بشكل ملحوظ. ومع ذلك، أدى التعبير الزائد عن SNRNP70 إلى انخفاض ملحوظ في شدة الفلورة لمؤشرات الالتهاب IL-6 وMMP13. تشير هذه النتائج إلى أن SNRNP70 التعبير الزائد قد يخفف من الالتهاب في الخلايا الغضروفية المعالجة ب IL-1β. تم التقاط جميع الصور المجهرية بتكبير 10 أضعاف. تعرض البيانات كمتوسط ± SD من n = 3 نسخ بيولوجية مستقلة. قيم p < 0.05 (*)، وقيم p < 0.01(**). شريط المقياس = 50 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
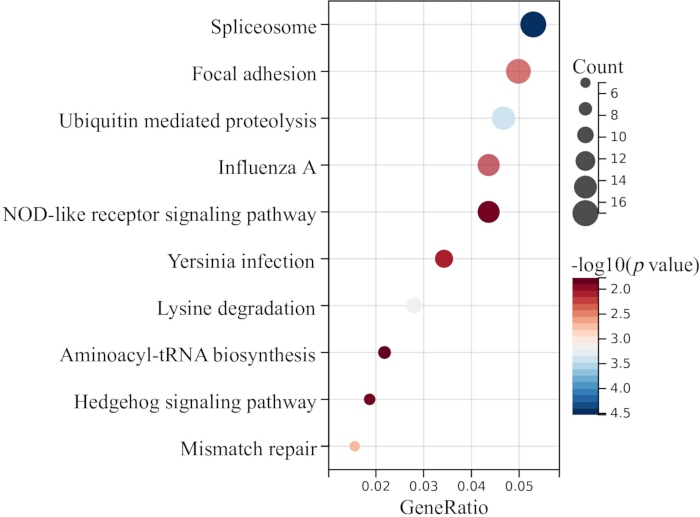
الشكل 7: تحليل إثراء KEGG القائم على الارتباط للجينات المرتبطة SNRNP70 في مجموعات بيانات التهاب المفاصل العظمي. أفضل 10 مسارات غنية تم تحديدها بواسطة clusterProfiler (تصحيح Benjamini–Hochberg). حجم الفقاعة = عدد الجينات؛ اللون = الدلالة (-log10(قيمة p )). يتوسط مسار الالتصاق البؤري (المبرز) التصاق الخلايا الغضروفية، والنقل الميكانيكي، وإعادة تشكيل ECM في الفتحات البصرية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
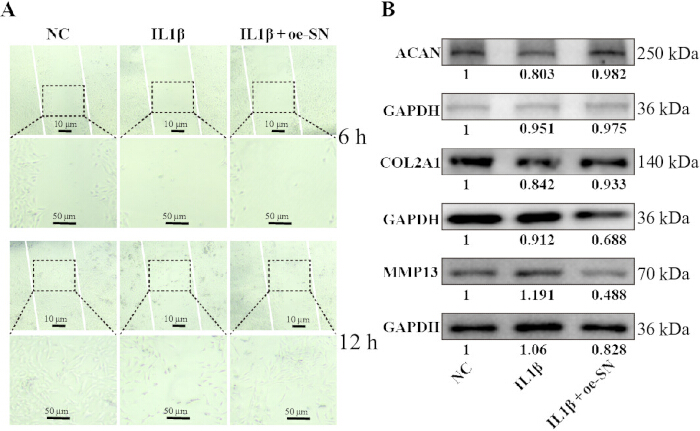
الشكل 8: SNRNP70 التعبير الزائد يعيد إصلاح الخلايا الغضروفية المعالجة ب IL-1β في الخلايا الغضروفية المعالجة ب IL-1β. (أ) صور لإغلاق الجرح الناتج عن الخدش أثناء المراقبة، معالج ب IL-1β، وIL-1β بالإضافة إلى غضروفية غضروفية ذات تعبير زائد SNRNP70. (ب) بقع غربية ممثلة لمصفوفة الغضروف الرئيسية والبروتينات الكاتابولية. تم فحص الأغشية لاختبار ACAN، COL2A1، وMMP13. يتم عرض GAPDH كجهاز تحكم تحميل. التكبيرات هي كما يلي: مجموعات NC، IL-1β، وIL-1β+oe-SN: عند تكبير 4x: شريط السلم = 10 ميكرومتر. عند تكبير 10 أضعاف: شريط المقياس = 50 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: التحليل الكمي لإغلاق الجرح وكثافة البقع الغربية. (أ) قياس كمية إغلاق الخدش في الخلايا الغضروفية الأولية من مجموعات NC وIL-1β وIL-1β + oe-SNRNP70. (ب) القياس الكثافتي لأشرطة البقع الغربية ACAN وCOL2A1 وMMP13. تم قياس شدة النطاق باستخدام ImageJ وتم تطبيعها إلى GAPDH. تعرض البيانات كمتوسط ± SD من n = 3 نسخ بيولوجية مستقلة. *p < 0.05، **p < 0.01. يرجى الضغط هنا لتحميل هذا الملف.
| جين الهدف | تسلسل البادئية الأمامية | تسلسل البادئية الأمامية |
| GAPDH | 5'-TCTCTGCTCCTCTGTGTCT-3' | 5'-ATCCGTTCACCACCGACCTTC-3' |
| SNRNP70 | 5'-جاجاكاتجكاكاكتكاك-3' | 5'-TGCGGTGTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
الجدول 1: البادئات للجينات المستهدفة. تظهر تسلسلات التمهيد الأمامية والعكسية ل GAPDH، SNRNP70، IL6، وMMP13 المستخدمة في qRT-PCR، جميعها في اتجاه 5′ > 3′. GAPDH كان التحكم الداخلي.
| معرف الدراسة | المنصة | نورث كارولينا (ن) | OA (n) | المناديل |
| GSE114007 | GPL11154، GPL18573 | 18 | 20 | الغضاريف |
| GSE117999 | GPL20844 | 10 | 10 | الغضاريف |
| GSE129147 | GPL15207 | 9 | 10 | الغضاريف |
| GSE169077 | GPL96 | 5 | 6 | الغضاريف |
| GSE12021 | GPL96 | 13 | 20 | السينوفيوم |
| GSE55457 | GPL96 | 10 | 10 | السينوفيوم |
| GSE89408 | GPL11154 | 28 | 22 | السينوفيوم |
| GSE82107 | GPL570 | 7 | 10 | السينوفيوم |
| GSE19060 | GPL570 | 3 | 5 | الغضروف الهلالي |
| GSE98918 | GPL20844 | 12 | 12 | الغضروف الهلالي |
| GSE51588 | GPL13497 | 10 | 40 | العظم تحت الغضروطي |
الجدول 2: مجموعات البيانات في هذه الدراسة من قاعدة بيانات GEO. ملخص ل 11 مجموعة بيانات GEO متاحة للجمهور تستوفي معايير الإدراج. لكل مجموعة بيانات، يتم توفير معرف الوصول، والمنصة، وعدد عينات الضابط الطبيعي (NC) والتهاب المفاصل العظمي (OA)، بالإضافة إلى نوع النسيج. n = عدد العينات.
المناقشة
تشير الدراسة الحالية إلى أن SNRNP70 قد يعمل كجين وقائي في مسببات التهاب الفصى الدهلية، وهو اضطراب مفصلي متعدد الأوجه يشكل تحديا عالميا كبيرا في الرعاية الصحية29,30. تعد هذه الدراسة الأولى التي تكشف عن دور SNRNP70 في التحليل الوظيفي. في هذه الدراسة، أظهرنا انخفاضا كبيرا في تعبير SNRNP70 في أنسجة الفتحات الهوائية، كما يتضح من تحليل بيانات GEO (SMD الكلي = -1.07، 95٪ CI: -1.34، -0.80؛ الشكل 2). ومن المهم أن هذا الاكتشاف تم التحقق منه لاحقا في الخلايا الغضروفية المعالجة ب IL-1β. علاوة على ذلك، استكشفت هذه الدراسة دور SNRNP70 في الاستجابة الالتهابية لخلايا الغضروف المعالجة ب IL-1β. وباعتباره جين وقائي مرتبط بالتهاب الخصيم، أظهر SNRNP70 القدرة على إعاقة تقدم الالتهاب الدهسي عن طريق كبح تعبير IL-1 وMMP13. حتى الآن، هذه هي أول دراسة تجريبية تبلغ عن تفاوت ملحوظ في مستويات التعبير SNRNP70 بين أنسجة الحمض النووي والأنسجة الخالية من الحمض العضوي (OA)، مما يشير إلى دور محتمل ل SNRNP70 في مسببات الالتهاب الصبغي الفاصل. هذه الملاحظة المثيرة تدفعنا للتفكير في الآثار التشخيصية المحتملة ل SNRNP70 في التفعيل الدهني.
التحليل التلوي الذي أجريناه، والذي دمج مجموعات بيانات ومصفوفات متعددة من تسلسل RNA، قدم أدلة على الأهمية التشخيصية المحتملة ل SNRNP70. أكد مؤشر SMD البالغ -1.07 على الانخفاض المستمر في تنظيم SNRNP70 في أنسجة التروسيوم الأكسمي، مما رفع من إمكانية فائدته كمرشح تشخيصي. وأكد تحليل منحنى التردد العائد هذه الإمكانات أكثر، حيث بلغت AUC بلغت 0.92، مما يدل على قوة تمييزية قوية. علاوة على ذلك، دعمت قيم الحساسية والنوعية المجمعة فكرة أن SNRNP70 قد تمكن من تشخيص التهاب الفصى البصري مبكرا وأكثر دقة. بعيدا عن وعدها التشخيصي، لا يزال SNRNP70 مرشحا ذا اهتمام في سياق إدارة التحليل الوظيفي. التسبب في التهاب الفوسح الصبغي هو عملية متعددة العوامل تشمل التحميل الميكانيكي الزائد، والشيخوخة، والاستعداد الوراثي، والالتهاب31,32. من بين هذه العوامل، اكتسب الالتهاب شهرة متزايدة كعامل رئيسي لتقدم التهاب الفصمالدهوي 33,34. ينظم سلسلة من الأحداث، بما في ذلك تدهور الغضروف، والالتهاب الزليلي، وتغير توازن المفاصل.
استكشفت هذه الدراسة الإمكانات المضادة للالتهابات في SNRNP70، مدفوعة بدورها كمكون للربطات35,36. باستخدام نموذج مختري، عولجت الخلايا الغضروفية بجرذ مؤتلف IL-1β لمحاكاة البيئة الدقيقة الالتهابية في مفاصل الحمض الدهني. تشير هذه النتائج إلى أن SNRNP70 قد تلعب دورا في تنظيم الالتهاب في الخلايا الغضروفية المحفزة ب IL-1β. قدمت اختبارات IF دعما إضافيا لخصائص SNRNP70 المضادة للالتهابات. أظهرت الخلايا الغضروفية المعالجة ب IL-1β زيادة في التعبير عن البروتينات الالتهابية، والتي تم تخفيفها بواسطة oe-SN. يسلط هذا التعديل في تعبير البروتين الالتهابي بواسطة SNRNP70 الضوء على ارتباط محتمل بسلسلة الالتهاب المرتبطة بمرض التهاب الفتحات الصبغية.
بينما تقدم هذه الدراسة أدلة رصدية على الإمكانات التشخيصية والعلاجية ل SNRNP70 في الفصول الدهنية، تظل الآليات الدقيقة وراء تأثيراته مجالا مثيرا للاهتمام.37. SNRNP70 هو مكون حاسم في السبليسوسوم، وهو مركب يشارك في ربط الحمض النووي الريبي، وهو عملية أساسية في تنظيم التعبير الجيني. يلعب ربط الحمض النووي الريبي دورا محوريا في التعبير الجيني من خلال إزالة المناطق غير المشفرة (الإنترونات) وربط مناطق الترميز (الإكسونات) لجزيئات mRNA، مما يشكل في النهاية البروتيوم 38,39,40. من المحتمل أن تأثير SNRNP70 في ربط الحمض النووي الريبي قد يؤثر على تعبير الجينات المرتبطة بمرض الالتهاب الدهمي الدهني. لا تزال الأهداف المحددة للحمض النووي الريبي وأحداث الربط التي تنظمها SNRNP70 في الأنسجة المتأثرة بالتوتيم الدهني غير محددة. قد يوفر فهم هذه الآليات رؤى قيمة حول الأسس الجزيئية للحمض التسيمي والأهداف المرشحة لمزيد من البحث. علاوة على ذلك، يجب أن تستكشف الأبحاث المستقبلية تفاعل SNRNP70 مع جزيئات أخرى متورطة في مسببات الالتهاب الدهوي الهوائي. يمكن أن يوفر دراسة تداخله مع مسارات الإشارات المرتبطة بالالتهابات، وتدهور الغضاريف، وإعادة تشكيل أنسجة المفاصل فهما أكثر شمولا لتأثيراته متعددة الأوجه.
هذه الدراسة لها بعض القيود التي تستحق النظر. بينما تضمن التحليل التلوي عددا كبيرا من مجموعات البيانات، قد تؤدي الاختلافات في تصميم الدراسة، والتركيبة السكانية للمرضى، ومعالجة البيانات إلى تنوع. بالإضافة إلى ذلك، اختلفت مجموعات البيانات المدرجة في أصل الأنسجة (مثل الغضروف مقابل الغشاء الزليلي) وفي منصات المعالجة، مما قد يفسر جزئيا التباين بين الدراسات (I2 = 73.3٪). علاوة على ذلك، استند هذا التحليل التكاملي إلى مجموعات بيانات بشرية متاحة للجمهور، بينما استخدمت التجارب الوظيفية الخلايا الغضروفية المعزولة من فئران حديثة الولادة. هذا التفاوت بين الأنواع يحد من مدى إمكانية تعميم النتائج المختبرية مباشرة إلى فيزيولوجيا الالتهاب الدهري البشري. تحذير آخر هو الاعتماد على نموذج تحفيز IL-1β الحاد، الذي يلتقط فقط الاستجابة الالتهابية المبكرة ولا يعكس بشكل كامل الطبيعة المزمنة والتدريجية والمتعددة العوامل لالتهاب الفصول الهوائية في البشر. بالإضافة إلى ذلك، اقتصرت التجارب الوظيفية على طرق اكتساب الوظيفة (SNRNP70 الإفراط في التعبير)؛ لم تجرى تجارب فقدان الوظيفة (مثل SNRNP70 الإسقاط)، مما يمثل قيدا للدراسة الحالية. وأخيرا، رغم أن تحليلات الارتباط تشير إلى SNRNP70 في مسار الالتصاق البؤري، لم يتم فحص أحداث ربط FAK بشكل مباشر، ولم تقدم أدلة تجريبية على أن إشارات الالتصاق البؤري تتغير بعد SNRNP70. لذلك، من الضروري التحقق من صحة مجموعات المرضى الأكبر والنماذج الحيوانية لتعزيز متانة هذه النتائج. علاوة على ذلك، استخدمت التجارب المختبرية نموذج زراعة الخلايا، الذي قد لا يعكس تماما البيئة الدقيقة المعقدة في الجسم الحي. من المتوقع أن تستكشف الدراسات المستقبلية تأثيرات SNRNP70 في نماذج الحيوانات للالتهاب الدهمي لتقييم إمكاناته العلاجية في سياق أكثر صلة فسيولوجيا.
الإفصاحات
لا يوجد تضارب مصالح لدى المؤلفين.
شكر وتقدير
تم تمويل هذا البحث من قبل مؤسسة غوانغشي للأبحاث الرئيسية في الصين (GuiKe AB22035014)، وصندوق الابتكار الخاص بفريق الابتكار المميز في أول مستشفى تابع لجامعة قوانغشي الطبية (YYZS2022003)، ومشروع الابتكار المشترك لعلوم وتكنولوجيا الصحة في مقاطعة هاينان لعام 2026 (WSJK2026QN087).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Primary antibody, dilution 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Primary antibody, dilution 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotics for cell culture |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Primary antibody, dilution 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Total protein concentration determination |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Real-time PCR detection system |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Chemiluminescence imaging system |
| Collagenase type II | Sigma-Aldrich | C6885 | Cartilage tissue digestion, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Nuclear counterstain |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Basal cell culture medium |
| ECL reagent | Thermo Fisher Scientific | 34580 | Enhanced chemiluminescence reagent |
| Fetal bovine serum | Gibco | 10082147 | 10% concentration as culture supplement |
| Fluorescent microscope | Olympus | BX53 | Immunofluorescence imaging (20x magnification) |
| GEO database | NCBI | N/A | Public RNA-seq and microarray datasets |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC curve analysis |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Secondary antibody |
| ImageJ software | NIH | N/A | Densitometric analysis software |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Transfection reagent |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA purity and concentration measurement (A260/280 ratio) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Overexpression plasmid |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiotic for cell culture |
| Primer-BLAST | NCBI | N/A | Gene-specific primer design |
| Primers (synthesized) | Sangon Biotech | N/A | Commercial synthesis of PCR primers |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail of protease and phosphatase inhibitors |
| PVDF membrane | Millipore | IPVH00010 | Protein transfer membrane |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | First-strand cDNA synthesis |
| RIPA buffer | Beyotime | P0013B | Cell lysis buffer with protease and phosphatase inhibitors |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Induce inflammatory response in chondrocytes |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | ROC curve analysis |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Automated protein expression detection system |
| Stata 14.0 | Stata | N/A | Meta-analysis |
| Streptomycin | Thermo Fisher Scientific | Antibiotic for cell culture | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | Real-time quantitative PCR |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Total RNA extraction from chondrocytes |
| Trypsin-EDTA | Gibco | 25200072 | Cell detachment, 0.25% trypsin-EDTA |
المراجع
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).