هدف هذا البروتوكول هو تمكين قياس عمر الفلورة الكمي لمجسات ريبوغلو لسير عمل تصوير RNA القابل لإعادة الإنتاج في المختبر، وفي الخلايا الثديية الحية، وفي النماذج الخلوية ثلاثية الأبعاد. نحدد إعداد العينات، وتسليم المجسات، وجمع البيانات، وسير العمل التحليلي الكمي لاستخراج قياسات عمر الفلورة غير المتحيزة.
مقالة منهجية
توصيف مجسات الريبوغلو في المختبر كأساس لتصوير الفلورة مدى الحياة في الخلايا الثديية الحية والنماذج الخلوية ثلاثية الأبعاد
* These authors contributed equally
† These authors contributed equally
في هذه المقالة
ملخص
الملخص
يتم نسخ ما يقرب من 80٪ من الجينوم البشري إلى RNA، بينما أقل من 2٪ يرمز للبروتينات، مما يشير إلى أن غالبية نسخ الثدييات غير مشفرة وتشارك في عمليات تنظيمية متنوعة. لذلك، فإن استشعار وتصور جزيئات الحمض النووي الريبي في أنظمة الخلايا الثديية الحية بشكل كمي أمر بالغ الأهمية لفهم ديناميكيات وتفاعلات الحمض الريبي، لكنه يظل تحديا تقنيا، خاصة في البيئات الخلوية المعقدة. ريبوغلو هو حساس حيوي للحمض النووي الريبي المشفر وراثيا، حيث يرتبط جهاز أبتامير RNA قصير بمسبار جزيء صغير، وينتج تفعيل فلوري قابل للقياس وتشغيله مدى الحياة ويمكن اكتشافه بواسطة مجهر تصوير عمر الفلورة (FLIM). هنا، نقدم سير عمل مفصل ل Riboglow-FLIM، يشمل تحضير العينات، وجمع الصور، والتحليل الكمي لمجموعات بيانات FLIM. هدف هذا البروتوكول هو تمكين الكشف الكمي عن الحمض النووي الريبي الفلوري مدى الحياة باستخدام ريبوغلو في بيئات الخلايا المسيطر عليها والخلية الحية. يتم عرض البروتوكول في المختبر، حيث تقاس التغيرات العمرية المعتمدة على الحمض النووي الريبي، وفي الخلايا الثديية الحية، حيث يتم تحديد اكتساب FLIM، واختيار منطقة الاهتمام، والتحليل تحت الخلوي. يتطلب التنفيذ الناجح تحكما دقيقا في معايير التجارب والاستحواذ. يتم تسليط الضوء على الاعتبارات الرئيسية للتنفيذ القابل لإعادة الإنتاج. معا، يعمل هذا البروتوكول كمرجع عملي لتطبيق ريبوغلو-فليم وتقييم التصوير الكمي للحمض النووي الريبي في الخلايا الحية.
المقدمة
في السنوات الأخيرة، أدت التطورات في فهم دور الحمض النووي الريبي في وظيفة الخلايا إلى حاجة متزايدة لرؤية الحمض النووي الريبي في الخلايا الحية، لا سيما في الحالات المرضية. ومع ذلك، فإن غياب الحمض النووي الريبي الفلوري الطبيعي يتطلب أنظمة وسم هندسية، غالبا ما تدمج مع مجسات فلوروجينية خارجية. نتيجة لذلك، تم تطوير مجموعة واسعة من أساليب تصوير الحمض النووي الريبي لتمكين تصور مواقع الحمض النووي الريبي والديناميكيات والتفاعلات في الأنظمة الحية.
تعتمد إحدى الفئات الرئيسية من طرق تصوير الحمض النووي الريبي على العلامات المشفرة جينيا. لا تزال أنظمة الفلوروفور-أبتامر واستراتيجيات الوسم القائمة على البروتين، مثل نظام طبقة بروتين MS2 (MCP)، مستخدمة على نطاق واسع 1,2. في نظام MS2، ترتبط حلقات جذع الحمض النووي الريبي ببروتينات غلاف العاثوم البكتيريوفاجي الملتصقة ببروتينات فلورية لتتبع النسخ في الخلايا الحية. رغم فائدته، يتطلب هذا النهج علامات RNA كبيرة نسبيا وإنتاج مكونات بروتينية إضافية، مما قد يعكر سلوك RNA الأصلي 1,2,3. أنظمة الفلوروفور الأبتيمر، بما في ذلك السبانخ4 والمتحورات اللاحقة مثل البروكلي5، الذرة6، مانجو7، والفلفل8، تتيح التنشيط الفلوري المباشر عند ارتباط الليجند وتوفر حجم علامة أقل. ومع ذلك، يمكن أن تعاني هذه الأنظمة من محدودية شدة الإشارة، والفلورة الخلفية، وتحديات في التعدد الخلوي في البيئات الخلوية المعقدة3.
تشمل الاستراتيجيات البديلة أنظمة الفلوروفور-الكبح وأساليب التهجين. تنتج أنظمة التفريغ الفلوري، بما في ذلك RhoBAST، الفلورة عند اضطراب التبريد بعد ارتباط الحمض النووي الريبي، لكنها قد تظهر إشارات خلفية وحساسية لتركيز المجس 3,9. توفر طرق تصوير الحمض النووي الريبي المعتمدة على التهجين، مثل smFISH والمنارات الجزيئية، خصوصية عالية لكنها تتطلب توصيل المجسات وغالبا ما تكون محدودة في التصوير الحي طويل الأمد للخلايا بسبب حركية الارتباط والتفاعلات خارج الهدف 10,11,12. تسلط هذه الأساليب مجتمعة الضوء على التحديات الرئيسية في تصوير الخلايا الحية للحمض النووي الريبي 3,13,14. على الرغم من هذه التطورات، هناك نقص في سير العمل الموحدة لتصوير الحمض النووي الريبي الكمي المعتمد على عمر الفلورة في الأنظمة البيولوجية المعقدة.
يحاول ريبوغلو التغلب على العديد من هذه القيود. ريبوغلو هو نظام وسم RNA مشفر وراثيا يجمع بين "وسم" RNA قصير مشتق من الريبوسويتش مع مسبار اصطناعي صغير من الجزيئات الصغيرة كوبالامين (Cbl)-فلوروفور، مما يمكن من تصور RNA للخلايا الحية15. Cbl، وهو مخفي طبيعي، ينفصل مكانيا عن الفلوروفور عند الارتباط بالعلامات، مما ينتج إضاءة فلورية قابلة للقياس بقوة15. كشف توسع ريبوغلو إلى مجهر تصوير عمري فلوري (FLIM) عن قراءة مستقلة إلى حد كبير عن تركيز الفلوروفور وشدة الإثارة، حيث تحافظ على التوازن في توصيل المجس والفروق بين المستخدمين16،17. والأهم من ذلك، أن تغيير جهاز الحمض النووي الريبي أبتامر يؤدي إلى أعمار فلورية فريدة، كما يظهر من خلال FLIM16. تمكن هذه المراحل المتعامدة من تصوير RNA متعدد الإصدارات، مما يسمح برؤية اثنين من RNA باستخدام فلوروفورواحد 16. تم التحقق من صحة المنصة عبر نماذج ثديية متنوعة، بما في ذلك U-2 OS وHeLa وMDA-MB-231 وخلايا HOS، مع التصور المتزامن ل mRNA ACTB وNORAD lncRNA 15,16,17. مؤخرا، تم استخدام ريبوغلو لرؤية الحمض النووي الريبي في أجنة الحيوانات الحية18. معا، تثبت هذه الدراسات أن ريبوغلو نظام صغير ومتعدد الاستخدامات لتصوير الحمض النووي الريبي الكمي متعدد الإصدارات.
في الأنظمة البيولوجية، تم تطبيق FLIM على نطاق واسع لدراسة التفاعلات الجزيئية، والتمثيل الغذائي، والديناميكيات الخلوية في الأنظمة الحية بسبب حساسيته للبيئة الجزيئية المحلية وقوته النسبية لتغيرات التجارب19. يقيس FLIM معدل تحلل الحالة المثارة من عينة فلورية، عادة باستخدام عد فوتون واحد مرتبط زمنيا (TCSPC). يقيس TCSPC الوقت بين إثارة العينة بالليزر ووصول الفوتون المنبعث إلى الكاشف، ويجمع أعمار الفوتونات المكتسبة في توزيع زمن وصول الفوتون لكل قياس. يوفر التصوير القائم على مدى الحياة ميزة مهمة من خلال تقليل الاعتماد على التركيزات للأجزاء الفلورية من النظام، بما في ذلك المجس المحمل في الخلايا، ومستوى تعبير الحمض النووي الريبي، وتغيرات المسار البصري. ومع ذلك، فإن تجارب FLIM تتطلب تحكما دقيقا في اكتساب الفوتونات، وتركيب النماذج، وسير عمل التحليل.
هنا، يعرض بروتوكول مفصل ل Riboglow-FLIM، يصف سير العمل لتحضير العينات، وجمع الصور، والتحليل الكمي لمجموعات بيانات عمر الفلورة. هدف هذه الدراسة هو إنشاء سير عمل قابل للتكرار للتصوير الكمي بتقنية ريبوغلو-فليم عبر الأنظمة البيولوجية. يعد ريبوغلو-فليم الأنسب للمقارنات الكمية ويتطلب خبرة متخصصة في أجهزة وتحليل FLIM. يتم عرض البروتوكول في المختبر، حيث تقاس التغيرات العمرية المعتمدة على الحمض النووي الريبي، وفي الخلايا الثديية الحية والأنظمة الخلوية ثلاثية الأبعاد حيث يتم تحديد اكتساب FLIM، واختيار منطقة الاهتمام، والاستخراج الكمي مدى الحياة باستخدام مجسات ريبوغلو. يضع هذا البروتوكول الأساس المهم لتأسيس سير عمل اقتناء FLIM ومبادئ لتحليل بيانات FLIM الكمي وغير المحايز، مما يمكن التطبيقات المستقبلية لأنظمة Riboglow-FLIM أو أنظمة FLIM الأخرى. يركز على اختيارات تصميم التجارب، وجمع البيانات غير المتحيز، والتحديات الشائعة التي تواجهها أثناء اقتناء وتحليل FLIM. بينما تم الإبلاغ سابقا عن عرض اكتشاف الحمض النووي الريبي في الخلايا باستخدام تراكيب ريبوغلو المعدلة إلى الريبوغلو، لم يقدم أي منها سير عمل للاكتساب والتحليل خطوة بخطوة، خاصة عبر الأنظمة ثنائية وثلاثية الأبعاد. معا، يوفر هذا العمل مصدرا لتطبيق ريبوغلو-فليم كأداة لتصوير الحمض النووي الريبي الحي.
البروتوكول
1. تحضير وتنقية الحمض النووي الريبي
- تجميع مكونات تفاعل النسخ في المختبرية في أنبوب عقيم للطرد المركزي الدقيق بسعة 1.6 مل كما هو محدد في تعليمات الشركة المصنعة لمجموعة تخليق الحمض النووي الريبي في المختبر .
ملاحظة: تم تصنيع الحمض النووي الريبي المستخدم في هذه التجارب باستخدام مجموعة النسخ عالية العائد TranscriptAid T7 (Thermo Fisher Scientific). يمكن إجراء تخليق الحمض النووي الريبي باستخدام أي بروتوكول معتمد، بما في ذلك مجموعات تجارية أخرى متاحة، كما تم إثباتسابقا 17,20,21.- باختصار، اجمع بين مخزن تفاعل النسخ، وNTPs، وخليط الإنزيم، وحمض نووي القالب، والماء الخالي من النوكلياز ليصبح الحجم الإجمالي 20 ميكرولتر.
- ضع الأنبوب ومحتوياته في حاضنة بدرجة حرارة 37 درجة مئوية لمدة لا تقل عن 4 ساعات وحتى الليل. قم بتنقية الحمض النووي الريبي المصنب باستخدام عمود تنظيف الحمض النووي الريبي كما هو محدد في تعليمات الشركة المصنعة لمجموعة تنظيف الحمض النووي الريبي.
ملاحظة: بروتوكول تنظيف الحمض النووي الريبي المستخدم في هذه التجارب كان مجموعة تنظيف الحمض النووي الريبي Monarch (مختبرات نيو إنجلاند البيولوجية). يمكن إجراء تنظيف الحمض النووي الريبي باستخدام أي بروتوكول معتمد يؤدي إلى RNA منقى (هنا، معرف بقيم A260/A230 وA260/A280 فوق 2.0)، بما في ذلك مجموعات تجارية أخرى متاحة، كما تم إثباتسابقا 17,20,21. جميع خطوات الطرد المركزي لتنظيف عمود RNA هي لمدة دقيقة واحدة عند 16,000 x g ما لم يذكر خلاف ذلك.- باختصار، رفع الحجم الكلي للحمض النووي الريبي المصنب إلى 50 ميكرولتر مع ماء خال من النوكليز، ثم أضف 100 ميكرولتر من محلول الارتباط يليه 150 ميكرولتر من الإيثانول بنسبة 100٪.
- قم بتحميل كل 300 ميكرولتر في العمود وأدخله في أنبوب تجميع. قم بطرد مركزي على العمود وتخلص من التدفق عبر العمود.
- أضف 500 ميكرولتر من محلول الغسيل إلى العمود وجهاز الطرد المركزي. تخلص من تدفق المرور.
- كرر الخطوة 1.2.3 مرة إضافية.
- قم بإزالة أنبوب الجمع من العمود وربط أنبوب طرد مركزي دقيق معقم بسعة 1.6 مل.
- أضف 15 ميكرولتر من الماء الخالي من النوكلياز إلى العمود واتركه في درجة حرارة الغرفة لمدة دقيقة واحدة.
- يتم السحب بالطرد المركزي إلى أنبوب الطرد المركزي الدقيق وتخلص من العمود.
- قياس تركيز ونقاء الحمض النووي الريبي المنقى باستخدام مطياف ميكروحجم.
- قم بإفراغ مقياس الطيف باستخدام 1 ميكرولتر من الماء الخالي من النوكليز.
- قم بتحميل 1 ميكرولتر من عينة RNA المنقاة على قاعدة العينة وقياسها.
- سجل تركيز العينة والنقاء، كما هو موضح بقيم A260/A230 وA260/A280.
- تخزين الحمض النووي الريبي المنقى عند -80 درجة مئوية.
2. مجسات ريبوغلو
ملاحظة: يمكن العثور على إجراء التصنيع لجميع مجسات ريبوغلو المدرجة في هذه الطريقة في الأدبيات المنشورةسابقا 21.
- تخزين مخزون المجسات (95 ميكرومتر) في أنابيب دقيقة خالية من RNase ومحمية بالضوء عند -20 درجة مئوية عند عدم الاستخدام.
- يذوب السلاح مباشرة قبل الاستخدام ويخفف إلى 4.5 ميكرومولار في مخزن RNA (100 مللي مولار KCl، 10 ملليمولار NaCl، 1 مللي مولار MgCl₂، 40 ملليمولار HEPES، رقم الهيدروجيني 8.0) لإجراء تجارب التصوير.
3. تحضير عينات في المختبر
ملاحظة: يجب تنفيذ جميع الخطوات المتعلقة بالحمض النووي الريبي المنقي في بيئة خالية من RNase، مثل غطاء الأبخرة المعالج بانتظام بمادة إزالة RNase.
- جهز محلول المختبر للحمض النووي الريبي ومسبار ريبوغلو.
- في أنبوب الطرد المركزي الدقيق الخالي من RNase، ادمج عينة RNA المنقاة مع مسبار ريبوغلو (Cbl-3xGly-ATTO590 أو Cbl-5xGly-ATTO590) إلى تركيز نهائي يبلغ 5.0 ميكرومولار RNA ومسبار ريبوغلو 4.5 ميكرومولار في مخزن RNA (100 mM KCl، 10 mM NaCl، 1 mM MgCl2، 40 mM HEPES pH 8.0). اخلط الماصة بلطف لتجانسها.
ملاحظة: من المهم أن يكون تركيز RNA أعلى من مسبار ريبوغلو في المحلول لضمان تشبع المجس بالحمض النووي الريبي. إذا كانت تركيزات الحمض النووي الريبي أو المجس محل شك، قد يتم زيادة تركيز الحمض النووي الريبي أو تقليل تركيز المجس لضمان التشبع21.
- في أنبوب الطرد المركزي الدقيق الخالي من RNase، ادمج عينة RNA المنقاة مع مسبار ريبوغلو (Cbl-3xGly-ATTO590 أو Cbl-5xGly-ATTO590) إلى تركيز نهائي يبلغ 5.0 ميكرومولار RNA ومسبار ريبوغلو 4.5 ميكرومولار في مخزن RNA (100 mM KCl، 10 mM NaCl، 1 mM MgCl2، 40 mM HEPES pH 8.0). اخلط الماصة بلطف لتجانسها.
- لف الأنبوب أو رف الأنبوب بورق الألمنيوم وحضن المحلول في درجة حرارة الغرفة لمدة لا تقل عن 20 دقيقة. انتقل إلى تصوير FLIM (الخطوة 6) مباشرة بعد الحضانة.
4. زراعة الخلايا
ملاحظة: تستخدم كل من خطوط خلايا HeLa وU-2 OS في هذه التجارب. بروتوكولات الزراعة وتحميل المجسات متطابقة. يجب إتمام أعمال زراعة الخلايا في خزانة السلامة البيولوجية (BSC) باستخدام تقنيات معقمة معيارية محددة بمعايير وإجراءات بيئة مختبر BSL-2.
- يقوم بإذابة الفروع المجمدة في أنبوب تجميد عند 37 درجة مئوية ويضع وسط زراعة الخلايا في حمام ماء بدرجة حرارة 37 درجة مئوية.
- أضف إلى أنبوب التبريد حجما متساويا من وسط زراعة الخلايا الدافئ. قم بتحريك الأنابيب صعودا وهبوطا برفق لتعليق الخلايا.
- أضف تعليق الخلية إلى طبق زراعة الأنسجة بحجم 90 مم ورفع الحجم الكلي لوسائط زراعة الخلايا إلى 10 مل. حضن الخلايا في حاضنة رطبة عند 37 درجة مئوية و5٪ ثاني أكسيد الكربون 2 على الأقل طوال الليل حتى تلتصق الخلايا.
- تصور الخلايا تحت المجهر الضوئي لتحديد مدى الالتصاق والتلاصق.
- عندما يصل التقاء القارئ إلى 80–90٪، تمر خلايا المرور.
- استنشق وسط زراعة الخلايا من صفيحة 90 مم. غسل الخلايا بإضافة 4 مل من محلول ملحي مخبأ بالفوسفات (1 × PBS) ووزعه على الخلايا عن طريق هز الطبق بلطف من جانب إلى آخر.
- استنشق PBS وأضف 2 مل من مادة التفكك. أعد الصفيحة إلى الحاضنة المرطبة ودع الخلايا تنفصل لمدة 5–10 دقائق.
- أثناء الحضانة، جهز على الأقل صفيحة جديدة واحدة للخلايا بإضافة 8 مل من وسائط زراعة الخلية. ضع علامة على اللوحة بالتاريخ، خط الخلية، ورقم الممر.
- بعد 5–10 دقائق، تخيل الانفصال تحت المجهر الضوئي. يجب أن تتحرك الخلايا المنفصلة في الوسط.
- قم بإزالة صفيحة الخلايا المنفصلة وانقل تقريبا نفس حجم وسائط زراعة الخلايا الطازجة إلى الألواح أو الصفائح. يتم نقل ما بين 1–3 مل من الخلايا المعلقة إلى الأطباق الجديدة حسب أهداف التجارب المستقبلية.
ملاحظة: تختلف الخطوط الخلوية في فترات نمو وحساسية مختلفة. بالنسبة لخلايا HeLa وU-2 OS، فإن نقل ~1 مل من تعليق الخلية من صفيحة متصلة بالكامل إلى صفيحة جديدة سيستغرق حوالي 4 أيام ليصبح متلاطما بالكامل مرة أخرى.
- لتصوير الخلايا، يتم تمرير الخلايا على ألواح تصوير بحجم 35 مم وغسلها/مرورها كما هو موضح أعلاه.
5. تحميل الخرز بمسبار ريبوغلو
- عندما تصل الخلايا إلى التقاء تصوير مناسب، أخرج طبق التصوير بقطر 35 مم من الحاضنة واستنشق الوسط. اغسل الخلايا ب 1 مل من 1X PBS كما هو موضح أعلاه، باستخدام T-motions، واسحب PBS.
- أضف 3 ميكرولتر من مسبار ريبوغلو 30 ميكرومولار كثلاث قطرات موزعة بشكل متساو على الخلايا. قم بإمالة الصفيحة بشكل دوراني لتوزيع محلول المجس بشكل متساو على سطح الخلية.
ملاحظة: يمكن أن يتراوح تركيز مجسات الريبوغلو بين 5–30 ميكرومولار. في التجارب الموضحة هنا، تم استخدام مخزون 30 ميكرومول. ومع ذلك، يستخدم 5 ميكرومولار عادة لعينات الخلايا المنقولة. - أضف طبقة رقيقة من خرز الزجاج إلى الطبق باستخدام موزع الخرز.
ملاحظة: تأكد من أن الخرزات تشكل طبقة أحادية فوق الخلايا وتجنب إضافة عدد زائد، فقد يصبح من الصعب إزالتها. - اضغط بقوة على سطح الطاولة بقوة 8–10 مرات لتسهيل تحميل الخرز22.
- افتح الطبق بسرعة وأضف وسائط زراعة الخلايا الطازجة. أعد الصفيحة إلى الحاضنة المرطبة لمدة 10 دقائق للسماح للمجس بدخول الخلايا.
- بعد 10 دقائق، أزل اللوحة واسحب وسط زراعة الخلايا، محاولا إزالة أكبر عدد ممكن من خرز الزجاج.
- اغسل الطبق مرارا وتكرارا باستخدام PBS لإزالة الخرزات الزجاجية المتبقية.
- أمسك الطبق بزاوية، وزع كمية صغيرة من PBS في أعلى الطبق ودعه يتدفق للأسفل، مع جمع الخرز على طول الطريق. استنشق PBS مع وجود خرز في أسفل الطبق. كرر العملية من 3 إلى 5 مرات حسب الحاجة لإزالة معظم الخرزات المتبقية.
ملاحظة: لا تكن حازما جدا مع نفاثات PBS خلال هذه الخطوة، فقد تنفصل الخلايا الملتصقة. إذا بقيت بعض الخرزات بعد عدة غسلات، فمن الأفضل تجربة التصوير بها بدلا من غسل الكثير من الخلايا عن طريق الخطأ.
- أمسك الطبق بزاوية، وزع كمية صغيرة من PBS في أعلى الطبق ودعه يتدفق للأسفل، مع جمع الخرز على طول الطريق. استنشق PBS مع وجود خرز في أسفل الطبق. كرر العملية من 3 إلى 5 مرات حسب الحاجة لإزالة معظم الخرزات المتبقية.
- أضف 1 مل من وسط التصوير الشفاف مع 10٪ FBS إلى طبق التصوير وحضن لمدة 10 دقائق. توجه إلى تصوير FLIM (الخطوة 6). يجب إكمال التصوير خلال 3 ساعات من تحميل الخرز.
ملاحظة: تم تعديل إجراء تحميل الخرزات لإدخال جزيئات فلورية إلى الخلايا الثديية الملتصقة من بروتوكول موصوف في مكان آخر22.
6. تصوير FLIM
ملاحظة: تم تعديل هذا البروتوكول للاستخدام مع مجهر نيكون Ti2 Eclipse AX كونفوكال مزود بأجهزة FLIM/FCS وبرمجيات NIS-Elements (انظر التفاصيل في جدول المواد).
- تشغيل المجهر في التسلسل التالي: مجهر ليزر الماسح الكونفوكلي، وحدة التحكم في المجهر، ثم نظام عد الفوتونات المفردة المرتبط بالزمن (TCSPC)، والذي يشمل وحدة دمج الليزر، كاشف المضاعف الضوئي، ومؤقت الحدث.
- بعد تشغيل المجهر، شغل الكمبيوتر المكتبي وافتح برنامج التقاط الصور وتحليلها.
- في خيارات الإقلاع، اختر "AX مع PicoQuant". انتظر حتى يبدأ برنامج التقاط الصور وتحليلها.
- بعد التشغيل، اختر "AX FLIM و FCS".
- قم بإعداد المجهر لجمع بيانات الفلورة مدى الحياة.
- على قسم وسادة AX:
- تأكد من اختيار جالفانو .
- اضبط المتوسط إلى 1.
- اضبط وقت التوقف على 2.
- على قسم طاقة الليزر:
- خفض منزلقات الليزر الفردية إلى 3–4٪.
- اضبط شريط تمرير All Laser على الصفر.
- على منصة TI2:
- تأكد من اختيار هدف 20x .
- في منطقة المسح، اختر 512 × 512.
- تأكد من تشغيل الكواشف الصحيحة. مثال على نظام ليزر 2:
- الكاشف 1 للليزر 560 نانومتر.
- كاشف 2 للليزر 640 نانومتر.
ملاحظة: حسب نوع التجربة، قد يستخدم ليزر أو أكثر. انقر بزر الفأرة الأيمن على الكواشف لتشغيلها أو إيقافها.
- حدد مسار ملف البيانات.
- اذهب إلى أسفل قسم وحدة التحكم، واضغط على "الإعدادات".
- اذهب إلى تبويب PicoQuant/FLIM FCS .
- تحت "مسار مساحة العمل" انقر على رمز المجلد على اليمين.
- اختر موقعا وأنشئ مجلدا جديدا للتجارب اليومية.
- أغلق قسم الإعدادات.
- على قسم وسادة AX:
- اختر "مباشر" حتى تظهر نافذة اقتناء الصورة، ثم اختر "مباشر" مرة أخرى لإيقاف جمع الفوتونات مؤقتا.
- ابدأ بإعداد نوافذ جمع بيانات FLIM.
- انقر بزر الفأرة الأيمن على نافذة الصورة الحية ثم اضغط على "إضافة PicoQuant".
- تمكين:
- منحنى التحلل
- تتبع وقت العرض
- عرض إحصائيات FLIM
ملاحظة: من الضروري النقر بزر الفأرة الأيمن على الصورة الحية في كل مرة لجميع هذه النوافذ الثلاث.
- انتقل إلى القسم الفرعي المناسب للبروتوكول حسب نوع العينة التي يتم تصويرها.
7. جمع البيانات في المختبر
- حمل عينة FLIM في المختبر .
- احصل على لوحة منزلقة أسود وغطاء تغطي. ضع غطاء على لوحة الانزلاق.
- ضع قطرة بحجم 5–20 ميكرولتر من العينة المختبرية على شريحة الغلاف.
- حمل لوحة الانزلاق على منصة المجهر.
ملاحظة: القطرات الأكبر حجما ~20 ميكرولتر أفضل من القطرات الصغيرة لأنها تستغرق وقتا أطول للتبخر. يمكن إبطاء التبخر أكثر بتغطية القطرة بغطاء صغير أو جسم مشابه الشكل. - باستخدام عصا التحكم، حرك الهدف بصريا نحو مركز القطرة.
- اختر "مباشر" وشاهد لوحة تتبع الوقت. سيعرض عدد الفوتونات التي تستقبلها الكواشف في وقت معين.
- ابحث عن ارتفاع Z الصحيح لقطرة العينة.
- استمر في ضبط ارتفاع Z حتى تصل إشارة تتبع الزمن إلى الحد الأقصى.
- ابدأ بزيادة قوة الليزر مع مراقبة معدل العد تحت شريط الكاشف. يختلف عدد الأهداف-في الثانية (CPS)، لكن من الأفضل الحصول على 1,000-10,000 فوتون لكل إطار.
- ابدأ بتحريك ارتفاع Z للأسفل ثم للأعلى لرؤية الحد الأقصى لتتبع الزمن مرة أخرى. هذا يمثل واجهة شريحة القطرة.
- انظر إلى ارتفاع Z المطلق في الزاوية اليمنى السفلية وزده ~20 ميكرومتر لتحريك التركيز على مركز القطرة. يجب أن تنخفض إشارة تتبع الزمن قليلا ثم تستقر.
ملاحظة: عند ارتفاع Z الصحيح، فإن زيادة أو تقليل ارتفاع z بشكل طفيف لن يغير بشكل كبير أثر الزمن أو متوسط لون الصورة الحية. بالإضافة إلى ذلك، يمكن العثور على حافة القطرة باختيار زر "الفأرة XY" في أعلى نافذة البث المباشر وتحريك الصورة.
- حدد إعدادات الاستحواذ.
- انظر إلى منحنى التحلل وانظر إلى أي عدد من الفوتونات يصل إلى ذروته. يمثل هذا العدد الإجمالي للفوتونات التي تم الحصول عليها في ثلاثة إطارات. باستخدام هذا الرقم، حدد عدد الإطارات المطلوبة لكل اقتناء. لتحليل FLIM في المختبر ، يرغب في الحصول على 10إلى 5 فوتونات إجمالا. يجب أن يكون 10–15 إطارا لكل عملية اقتناء كافيا.
- استنادا إلى عدد الإطارات المحدد، اضبط قيمة "التقاط".
- لكل التقاط، أوقف الصورة الحية، اختر "التقاط"، اسمح بجمع البيانات، ثم اضغط "مباشر" مرة أخرى واستخدم زر "الفأرة XY" للانتقال إلى مكان جديد.
- كرر الخطوة 7.5 للنسخ التقنية حتى يتم جمع بيانات كافية.
ملاحظة: كل التقاط فردي سينتج في النهاية قيمة عمر فلورية واحدة لتلك العينة. لجمع خمسة عشر نقطة بيانات مدى الحياة، أكمل الخطوة 7.5 خمسة عشر مرة إجمالا. - بعد جمع جميع البيانات، قم بإغلاق برنامج التقاط الصور وتحليلها وتصدير بيانات المجهر التصويري مدى الحياة الفلوري (FLIM).
- افتح مستكشف الملفات وانتقل إلى الموقع المحدد مسبقا للبيانات.
ملاحظة: كل جلسة جمع بيانات FLIM ستنتج مجلد .sptw واحد، حيث يمكن العثور على جميع بيانات تلك الجلسة. يقوم NIS Elements بتسمية المجلد تلقائيا باستخدام تاريخ التجربة، وسيتم تسمية الاقتواذات الفردية باستخدام وقت الاستحواذ. - تصدير مجلد .sptw وتابع إلى معالجة FLIM.
- افتح مستكشف الملفات وانتقل إلى الموقع المحدد مسبقا للبيانات.
8. جمع بيانات الخلايا ثنائية الأبعاد
- إذا لم يكن قد تم ذلك بالفعل، قم بإعداد ترتيب الليزر الصحيح لتجربة الخلية.
- اذهب إلى "إعدادات التجربة" في أعلى يمين الصفحة، بجانب الليزر.
- اضغط على "إضافة" بجانب صندوق الصبغة متعدد القنوات.
- أضف الأصباغ المطلوبة.
ملاحظة: معظم مجسات ريبوغلو تستخدم فلوروفور ATTO 590، لذا يجب إضافة هذا الصبغة لمعظم تجارب ريبوغلو. - اضغط على وضع الخبير.
- هنا، قم بضبط أي كاشف يستقبل أي طيف انبعاث. من الناحية المثالية، يجب توجيه أطياف الانبعاث التي تتداخل بين الإثارة/الانبعاث إلى كواشف مختلفة. تفضل كواشف GaAsP على كواشف MA، لأن كواشف MA غير قابلة للضبط.
- على اليسار، غير ترتيب المرور لتقليل التداخل بين الأصباغ ذات التداخل.
- احفظ الإعدادات وسم التكوين الجديد لليزر. اخترها للتجربة.
ملاحظة: يجب إكمال هذه الخطوة مرة واحدة فقط لكل ملف تعريفي، ويجب حفظها في ملف المستخدم للتجارب المستقبلية.
- افتح نافذة نظرة عامة XYZ بالملاحة إلى عرض > التحكم في الاستحواذ > نظرة عامة على XYZ. تظهر هذه الرؤية مكان التقاط كل صورة على المسرح وتساعد في منع التكرار العرضي.
- تابع تحميل العينات.
- قبل تحميل طبق التصوير، تأكد من إضافة صبغة نووية للخلايا الحية. تستغرق الصبغة ~30 ثانية لاختراق الخلايا وتسمح برؤية النوى.
- ضع طبق التصوير على المجهر. ادفع الطبق إلى أقصى حد ممكن إلى أسفل اليسار في مرحلة المجهر. قم بلصق العينة على المسرح إذا كنت تستخدم أهدافا غير هوائية لمنع انحراف xy.
ملاحظة: لصق العينة على مرحلة المجهر ضروري لمنع تحرك الطبق عند استخدام الأهداف غير الهوائية. - انتقل إلى قناة DAPI وابدأ برفع ارتفاع Z باستخدام المقبض الموجود على جانب وحدة التحكم. تقدم ببطء حتى تتضح أنوية الخلية.
- اضبط "الجزر" على وحدة التحكم المجهرية لضبط حساسية مقبض ارتفاع Z.
- إذا لم تظهر الخلايا في النظر، فقد يكون من الضروري تعديل إحداثيات XY إلى منطقة من الصفيحة بها نوى.
- اضبط تركيز PFS التلقائي على "تشغيل" في لوحة التحكم بالمجهر.
- على الجانب الأيمن من لوحة AX، اختر العدسة المكبرة بجانب زر PFS. سيبدأ المجهر في التكيف لتطبيع ارتفاع Z. عند الانتهاء، يجب أن يضيء زر PFS ويقول "في التركيز" للدلالة على أن PFS مفعل.
ملاحظة: يقلل نظام التركيز المثالي (PFS) من انحراف Z الناتج عن حركة المرحلة XY أو التجارب المطولة. عند اختيار PFS، استخدم سرعتين لأي تعديل ارتفاع Z لأن PFS سيواجه تلقائيا التعديلات الصغيرة.
- على الجانب الأيمن من لوحة AX، اختر العدسة المكبرة بجانب زر PFS. سيبدأ المجهر في التكيف لتطبيع ارتفاع Z. عند الانتهاء، يجب أن يضيء زر PFS ويقول "في التركيز" للدلالة على أن PFS مفعل.
- قبل بدء جمع بيانات الخلايا، تأكد من أن كاشف AX يستخدم للبحث عن الخلايا، وليس كواشف FLIM/FCS.
- عند البحث عن الخلايا، استخدم قناة DAPI للعثور على مناطق الخلايا، ثم انتقل إلى قناة ATTO 590 للعثور على الخلايا التي تم تحميلها فعليا بواسطة الخرز.
ملاحظة: كفاءة تحميل الخرزات أقل بكثير (في أيدينا، ~30٪ الخلايا محملة بالخرز) مقارنة بكفاءة التلوين النووي، لذا ليست كل الخلايا التي تحتوي على نوى فلورية تحتوي على ATTO 590. - بمجرد تحديد الخلية، انقر عليها مرتين لمركزها في الإطار. بدلا من ذلك، انقر بزر الفأرة الأيمن على نافذة الاستحواذ واضغط على "نقل هذه النقطة إلى المركز".
- بمجرد أن تكون الخلية في الوسط، انتقل إلى "AX FLIM و FCS".
- في أسفل يمين الشاشة، تأكد من اختيار "512 × 512".
- في النافذة الصغيرة في أسفل اليمين، ضبط الإطار ليتناسب مع الخلية عن طريق النقر والسحب على الزوايا. دع الإطار الجديد يتحول إلى اللون الأحمر. انقر بزر الفأرة الأيمن داخل الإطار أو اختر "Live" حتى يتحول الإطار إلى اللون الأخضر، مما يدل على أن التعديل قد تم إجراءه.
- قم بضبط عدد الالتقاطات إلى القيمة المطلوبة.
ملاحظة: ما لا يقل عن 10 إلى4 فوتونات كلها مثالية للتجارب الخلوية. بالنسبة للتجارب تحت الخلية، يكون إجمالي 10أو 5 فوتونات أو أكثر مثاليا لأن نسبة كبيرة من الفوتونات ستستبعد عند تعريف منطقة الاهتمام (ROI). بالنسبة لإطار 512 × 512، عادة ما تكون ~30 إطارا كافية للحصول على خلوية. الحصول على عدد أكبر أو أقل من التسجيلات سيزيد الدقة أو سرعة الالتقاط، على التوالي. - اختر "التقاط". يجب أن تظهر نافذة جديدة مع عملية الالتقاط. يجب أن يظهر مربع تقدم الالتقاط على الجانب الأيمن من الشاشة بالقرب من صندوق إدخال الالتقاط.
- وفي هذه الأثناء، افتح برنامج تحليل التصوير الفلوري مدى الحياة (FLIM) وانتقل إلى مسار الملف الصحيح. سيتم ملء عمليات الاستحواذ تلقائيا على نافذة برنامج تحليل FLIM، ويمكن إعادة تسميتها عند الاستحواذ.
- بعد اكتمال الالتقاط، عد إلى كاشف AX واختر "Live" للبحث عن خلية جديدة. يمكن تعديل حجم نافذة AX FLIM/FCS في أي وقت لتناسب الخلايا الأكبر أو الأصغر.
- استمر في جمع خلايا جديدة خلال فترة التصوير التي تستمر 3 ساعات.
- عند الانتهاء، قم بتصدير ملف .sptw الذي تم إنشاؤه باتباع الخطوة 7 في "جمع البيانات في المختبر ".
- انتقل إلى معالجة FLIM عند الانتهاء.
9. 3D جمع بيانات FLIM الخلوي في Z-Stack
- إعداد الليزر الكامل، وضبط ارتفاع Z، والبحث في الخلايا كما هو موضح في جمع بيانات الخلايا ثنائية الأبعاد، الخطوات 8.1 - 8.12.
- في أعلى منطقة الإعدادات، انتقل إلى تبويب "اكتساب ND".
- انقر على مربع اختيار "XY"، ويجب أن يظهر جدول.
- إذا كانت هناك أي إحداثيات في الجدول، انقر على "مسح القيم" في أعلى يمين الجدول.
- انقر على "إضافة" في أعلى الجدول لإضافة الخلية إلى الجدول.
- يجب أن تملأ هذه الإحداثيات الحالية XY للمرحلة، وقيمة Z/PFS.
- انقر على مربع "Z" فوق الجدول.
- باستخدام جهاز التحكم الحي في الالتقاط والمجهر، انزل إلى أسفل الخلية بالقرب من اللوحة. بمجرد العثور على أسفل الخلية، اضغط على زر "الأسفل" الأصفر بجانب المكعب لاستخدام هذا الارتفاع Z كأسفل الخلية.
- كرر هذه العملية مع أعلى الخلية، ثم اضغط على زر "الأعلى" بعد التنقل إلى أعلى الخلية باستخدام وحدة التحكم بالمجهر.
- أسفل المكعب، اضغط على الزر بجانب مربع "الخطوة". سيملأ هذا مربع الخطوات بعدد الخطوات الموصى به لارتفاع Z المحدد.
ملاحظة: زيادة عدد الخطوات ستزيد من الدقة النهائية على محور Z بالإضافة إلى وقت الاستحواذ. يجب أيضا تحليل كل شريحة من الخلية بشكل فردي لتحديد المشهد الطبيعي الافتراضي للخلية بأكملها، لذا يجب أيضا أخذ وقت تحليل الصورة هذا في الاعتبار عند تحديد عدد الخطوات لكل خلية. انظر "القسم الفرعي: معالجة FLIM الخلوية" للتفاصيل الكاملة حول عملية تركيب FLIM قبل اتخاذ قرار عدد الخطوات لتجربة مكدس Z. - في تبويب "الاستحواذ"، غير عدد الإطارات إلى نصف العدد الطبيعي تقريبا.
ملاحظة: هذا بشكل أساسي لتوفير الوقت، لأن جودة أي شريحة Z-stack فردية أقل أهمية لجودة الصورة النهائية. للحفاظ على جودة صورة دقيقة، اختر عددا عاديا أو حتى أكبر من التسجيلات لكل شريحة. هذا سيطيل وقت الاستحواذ. - عند العودة إلى جدول "اكتساب ND"، اختر "تشغيل الآن".
- السماح للمجهر بالتقاط جميع شرائح الخلية؛ سيختلف وقت الاستحواذ حسب عدد الشرائح والقبض المختار لكل شريحة.
- بعد جمع الصورة، احفظها كملف .nd2 وصورها ثلاثية الأبعاد باستخدام زر "عرض عرض الصوت" في أعلى نافذة الاستحواذ.
- إذا كان من الضروري الحصول على صور كونفوكال لمكدس Z الخلوي، التقط صورة مطابقة للخلية باستخدام كواشف AX.
- انتقل إلى كواشف AX باختيار "AX" بالقرب من أعلى لوحة التحكم.
- في جدول "اكتساب ND"، اختر "تشغيل الآن". الصورة الكونفوكال ستستغرق وقتا قصيرا جدا لاكتسابها مقارنة بصورة FLIM.
- عند الانتهاء، قم بتصدير ملفات .sptw التي تم إنشاؤها باتباع الخطوة 7 في قسم "جمع بيانات FLIM في المختبر ".
- يمكن تصدير صورة الكونفوكال كملف .nd2 وحفظها في موقع معروف على الكمبيوتر.
- تابع إلى "معالجة FLIM" عند الانتهاء.
10. معالجة FLIM
- معالجة FLIM العامة/في المختبر
ملاحظة: للاطلاع على تعديلات البروتوكول الخاصة ببيانات FLIM الخلوية، مثل اختيار العائد على الاستثمار، انظر معالجة FLIM الخلوية (انظر الخطوة 10.2).- إطلاق برنامج تحليل FLIM.
ملاحظة: إذا كان مفتاح برنامج تحليل FLIM متصلا بنفس الحاسوب الذي يربط به المجهر، يجب تشغيل المجهر بالكامل ليتمكن البرنامج من تشغيله. إذا كان مفتاح البرنامج على جهاز كمبيوتر منفصل، فقد يظهر البرنامج رسالة الخطأ "فشل إقلاع الجهاز. لا يمكن توصيل TCSPC"، ويمكن تجاهل ذلك بأمان. - افتح ملف .sptw الخاص ب FLIM في برنامج تحليل FLIM باستخدام إحدى الطرق التالية:
- في أعلى الشاشة، انتقل إلى ملف > Open Workspace > [اختر موقع ملف .sptw].
- انقر واسحب ملف .sptw من موقعه المحفوظ وضعه في نافذة برنامج تحليل FLIM في المربع الأبيض الكبير على يسار النافذة.
ملاحظة: لكي تتمكن برامج تحليل FLIM من التعرف على مجلدات FLIM، يجب أن تنتهي ب ".sptw" وتحتوي على ملف WSLogfile. تأكد من عدم إزالة هذه المعرفات عند إعادة تسمية أو نقل مجلدات البيانات. عند التحميل بنجاح، ستشغل مربعات خضراء صغيرة النافذة على اليسار، تمثل عمليات جمع البيانات الفردية.
- انقر بنقرة واحدة على أحد الاستحواذات الخضراء.
- انتقل إلى > > التحليل في FLIM واختر "ابدأ". سيبدأ ملف FLIM في التحميل.
- بمجرد التحميل، يمكن إزالة شريط التدرج التلقائي عن طريق النقر بزر الفأرة الأيمن على نافذة العينة وإلغاء تحديد خيار "عرض شريط السلالم".
- اختر الخيارات المنسدلة التالية في تبويب تركيب التعمق:
- نموذج التركيب: الالتفاف الأسي N
- الانحلال: التحلل العام
- IRF: حساب IRF
ملاحظة: صور FLIM في المختبر عادة ما تكون متجانسة ولا تتطلب عائد استثمار. ومع ذلك، قد تكون هناك ميزات صورة غير مرغوبة يجب حذفها. إذا كان الأمر كذلك، حدد عائد الاستثمار بالنقر بزر الفأرة الأيمن على نافذة العينة واختيار أحد خيارات رسم العائد على الاستثمار المختلفة. انقر مع الاستمرار لتحديد المنطقة. يجب أن تصبح القيم المستبعدة أحادية اللون، بينما تبقى القيم المختارة ملونة. يستخدم IRF المحسوب للاتساق؛ ومع ذلك، قد يوفر IRF المقاس دقة محسنة لبعض الظروف التجريبية ويجب النظر إليها حيثما توفرت17.
- في الأسفل، اختر زر "Initial Fit" البرتقالي. سيحسب البرنامج خط التوافق الأفضل ويرسمه باللون الأسود بجانب بيانات منحنى الانحلال الأخضر.
- حلل الملاءمة والبقايا الناتجة وحدد جودة الملاءمة.
- تحت منحنى الانحكاك، انظر إلى البواقي المولدة وحدد جودة الملاءمة. تشير البقايا العشوائية الشبيهة بالضوضاء إلى ضبط جيد الجودة، بينما تشير ميزات الخط المميزة والمنحدرات الناعمة إلى ضعف التوافق.
- قيمة χ2 لتقييم جودة التركيب موجودة في أسفل يمين طاولة التركيب. يقترب χ2 من 1 مع تحسن الملاءمة.
ملاحظة: مخطط البواقي هو مجرد تمثيل خطي للتداخل بين منحنى التحلل المحسوب (الخط الأسود) ومنحنى التحلل المقاس (الأخضر). وهذا يعني أنه يمكن تقييم جودة المقاس من خلال رؤية مدى توافق المنحنيين. مزيد من التفاصيل حول ملاءمة بيانات FLIM مقدمة في منشور حديث23.
- قم بضبط عدد المعلمات لزيادة جودة التركيب حسب الحاجة.
- بجانب "معلمات النموذج"، زد قيمة n بمقدار 1 واختر "الملاءمة الأولية". سيتم حساب المنحنى الجديد، وسيتم عرض البواقي الجديدة وقيمة χ2 .
- قيم جودة هذا التركيب الجديد وحدد ما إذا كانت هناك حاجة إلى معايير إضافية.
- كرر الخطوات 10.1.9.1. إلى 10.1.9.2. حتى يصل التحلل النموذجي إلى جودة مثالية.
ملاحظة: يجب تقليل عدد المعلمات مع تحقيق أعلى جودة ممكنة من الملاءمة. إذا أنتجت معلمتان خصائص ملاءمة متطابقة تقريبا، يجب استخدام عدد أقل من المعاملات. نظريا، عدد معلمات النموذج يتوافق مع عدد الأنواع المنتجة مدى الحياة في العينة، أما في الممارسة العملية، ففي الممارسة الوظيفية، يزداد العدد المثالي للمعلمات مع تزايد تعقيد النظام المرئي. - بعد تحديد العدد النهائي للمعلمات، يمكن تسجيل عمر τAvAmp الموزون (τ AvAmp [ns]) من جدول تركيب الانحكاك.
ملاحظة: متوسط سعة تاو (τAvAmp) ومتوسط شدة تاو (τAvInt) هما مقياسان لمتوسط عمر التألق للعينة. ومع ذلك، فإن الحسابات المستخدمة لتحديد كل قيمة مختلفة، وهما غير قابلين للاستبدال. بشكل عام، τAvAmp هو مقياس أكثر دقة للأنظمة البيولوجية23. - للحصول على صورة FLIM الملاءمة للعينة، أجرى طرح الخلفية باستخدام البيانات المجهزة وأجري ملاءمة FLIM.
- بالنسبة لمربعات الاختيار البيضاء في جدول تركيب الانحكاس، قم بإلغاء تحديد جميع المربعات باستثناء مربعات τn[ns]. عدد صناديق τn[ns] سيتوافق مع عدد معاملات التوافق المحددة.
- غير قيمة BkgrDec[Cnts] إلى الصفر.
- إلى يسار نافذة العينة مباشرة، اختر "FLIM Fit". سيبدأ البرنامج في تركيب العينة.
- بعد التركيب، يمكن تعديل إعدادات عرض مقياس الألوان الزائفة والشدة عن طريق تعديل الأساطير على يمين نافذة العينة.
- يمكن تصدير الصورة النموذجية كبت ماب لمزيد من معالجة الصور عن طريق النقر الأيمن > تصدير > البت ماب أو البت ماب باستخدام Colorscale.
- إطلاق برنامج تحليل FLIM.
- معالجة FLIM الخلوية
- إكمال الخطوات 10.1.1 - 10.1.5 في معالجة FLIM بشكل عام/في المختبر .
- حدد عائد الاستثمارات الخلوي بالنقر بزر الفأرة الأيمن في نافذة عرض العينة واختيار أحد خيارات رسم العائد على الاستثمار.
ملاحظة: بسبب أشكالها غير المنتظمة، غالبا ما يكون خيار العائد على الاستثمار الحر هو الأفضل لتعريف الخلايا. يمكن استبعاد منطقة من عائد الاستثمار من خلال الاحتفاظ ب CTRL أثناء تعريف المنطقة. يمكن إضافة مساحة إضافية إلى عائد الاستثمار المحدد مسبقا بالضغط المستمر على SHIFT. عند تحليل الحجرات تحت الخلية، قد لا تكون البقع الفلورية المرئية في الصور الكونفوكالية مرئية في صورة FLIM التالية. في هذه الحالات، ينصح باستخدام الصورة الكونفوكال كمرجع لرسم عائد الاستثمارات في صورة FLIM. - اختر الخيارات المنسدلة التالية في تبويب تركيب التعمق:
- نموذج التركيب: الالتفاف الأسي N
- الانحلال: عائد الاستثمار
- IRF: حساب IRF
- أكمل بقية الإجراء في معالجة FLIM العامة/في المختبر، الخطوات من 7 إلى 13.
النتائج
يمكن العثور على نظرة رسومية كاملة على سير العمل التجريبي في الشكل 1. لتقليل التحيز التجريبي، يمكن تحليل مجموعات البيانات بشكل أعمى. كمثال لهذا الغرض، تم إخفاء جميع هويات العينات عن الباحثين أثناء جمع البيانات ومعالجتها. وبالتالي، يتم تصنيف المجموعات التجريبية حسب معرفها المعين (المجموعة أ، المجموعة ب، إلخ)، وتعرف هوياتها الحقيقية في النص وترجمة الصور.
بعد تنقية وسم الحمض النووي الريبي A في الاختبار، تم قياس عمر التألق في المختبر لاثنين من مسبارين ريبوغلو، Cbl-3xGly-ATTO590 (3xGly) وCbl-5xGly-ATTO590 (5xGly)، في وجود وغياب علامة RNA A A. المجسات 3xGly و5xGly متطابقة باستثناء عدد تكرارات الجليسين الأحادية في أجزاء الربط الخاصة بها، ثلاثة ل 3xGly وخمسة ل 5xGly (الشكل 2D). تم جمع وتحليل عمر التألق في المختبر باستخدام الطرق الموضحة أعلاه، وتم تحليل التحلل الكلي دون اختيار عائد الاستثمارات (الشكل 2E-2G). بعد إعادة الالتفاف الأسية n، تم استخراج قيم τAvAmp ورسمها بواسطة مجموعة تجريبية (الشكل 3B). تم إنتاج نوافذ اكتساب FLIM تمثيلية مع مقاييس ألوان زائفة مطبعة لكل مجموعة، وتظهر أنها تتوافق مع قيم τAvAmp المجمعة التي تتوافق مع نوع العينة الخاص بها (الشكلان 3A و3B). كما هو متوقع، كانت العينات التي تحتوي على علامة RNA A (المجموعتين B و C) ذات قيم عمر فلورية أعلى بشكل ملحوظ مقارنة بتلك التي لا تحتوي على علامة RNA A (المجموعتين A و D). تظهر منحنيات التحلل التمثيلية لكل مجموعة تجريبية أن وجود علامة A للحمض النووي الريبي يزيد من عمر الاختبار المستخرج (الشكل 3C). بالنسبة للعينات التي لا تحتوي على علامة RNA A (علامة RNA)، يتم تحريك منحنيات التحلل إلى اليسار، مما يشير إلى قيم عمر متوسطة أقصر مقارنة بالعينات التي تحتوي على علامة RNA A.
لدراسة عمر التألق في الخلايا الحية، تم إجراء تحميل خرز لخلايا HeLa الملتصقة كما هو موضح أعلاه باستخدام مجسات ريبوغلو 3xGly و5xGly (الشكل 4A). تم استخدام تحليل FLIM لتحديد ما إذا كانت مجسات ريبوغلو المختلفة تنتج إشارات حياة فريدة في الخلايا الحية. تم اختيار الخلايا لقياس FLIM بناء على وجود مسبار ريبوغلو محشو والصحة العامة للخلية. تم اختيار الخلايا بناء على التحميل المجسي المؤكد والشكل الطبيعي قبل التحليل مدى الحياة، بغض النظر عن نتائج الفلورة مدى الحياة. تم تحليل بيانات FLIM المجمعة باستخدام العائد على العائد للحد من إشارات الفلورة خارج الهدف (الشكل 2H، الشكل 4B). أظهرت النتائج أن عمر الفلورة الخلوية للخلايا المحملة بخرزات ب 3xGly (المجموعة E) كانت أقل بشكل ملحوظ من تلك المحملة ب 5xGly (المجموعة F، الشكل 4D). يمكن رؤية هذا الاتجاه بشكل أعمق من خلال منحنيات التحلل التمثيلية لمجموعتي العينة، حيث يكون لدى الخلية المحملة ب 3xGly منحنى تحلل مائل إلى اليسار مقارنة بالخلية المحملة ب 5xGly، مما يشير إلى متوسط عمر فلوري أقل (الشكل 4C). تظهر هذه النتائج فائدة البروتوكولات الموصوفة في استخراج عمر الخلايا لمجسات ريبوغلو من صور خلوية ثنائية الأبعاد.
ثم هدفنا لحل ريبوغلو-فليم في الأقسام تحت الخلية. كمثال، اخترنا إشارات FLIM النووية مقابل إشارات FLIM السيتوزولية. تم جمع عمر نوى الخلايا ومقارنته بعمر السيتوسوليك لدراسة التغيرات العمرية بين أقسام الخلايا (الشكل 5). تم جمع صور كونفوكال للخلايا ذات البقع النووية الزرقاء إلى جانب صور FLIM واستخدمت لتحديد ROIs النووية والسيتوسول (الشكل 2J، الشكل 5C). كشف تحليل FLIM لنوى الخلايا والسيتوسول المحملة ب 3xGly و5xGly عن فرق كبير طوال العمر بين الأقسام تحت الخلوية في كلا المجموعتين (الشكل 5F). تماشيا مع الملاحظات السابقة، فإن نواة الخلايا المحملة بمسبار ريبوغلو لها أعمار فلورية أعلى باستمرار من السيتوسول في نفس الخلية. كان عمر النواة، في المتوسط، أعلى ب 0.18 نانوثانية و0.13 نانوثانية من السيتوسول لجرليمون 3xGly و5xGly على التوالي. ومن المهم أن نافذة اكتساب مقياس الألوان الزائف، منحنيات الانحساس، وقيمτ AvAmp المستخرجة كلها تظهر نفس اتجاه عمر الفلورة (الشكل 5C-الشكل 5F). كانت هذه الفروقات في عمر النووي مقابل العمر السيتوزولي صغيرة لكنها تم اكتشافها باستمرار من خلال سير عمل تحليل البيانات القوي لدينا.
لإثبات فائدة FLIM في الأنظمة المعقدة بشكل متزايد، تم جمع وتحليل مجموعات Z الخلوية ثلاثية الأبعاد. تم تصوير أربع خلايا في ثلاثة أبعاد باستخدام شرائح Z-stack، حيث تراوح عدد الشرائح من 10 إلى 15 لكل خلية. لكل شريحة خلوية، تم جمع عائد المؤشرات من النواة والسيتوسول، وتم رسم وتحليل قيم τAvAmp المستخرجة لجميع الشرائح باستخدام اختبار t مزدوج (الشكلان 5A و 5B، 5G). أظهرت نتائج جميع التجارب أنه لا يوجد فرق ذي دلالة إحصائية بين عمر النواة والسيتوسول في هذه الخلايا. قد يكون ذلك بسبب انخفاض عدد الفوتونات لكل شريحة Z وحجم العينة المحدود، مما قد يقلل من القدرة الإحصائية ودقة العمر في التحليل ثلاثي الأبعاد. تسلط هذه البيانات الضوء على أهمية حجم العينة وعدد الفوتونات في جمع بيانات FLIM، حيث تكشف تحليلات الخلايا المتعددة مع عدد فوتونات أعلى لكل التقاط عن اختلافات عمرية لا تظهر في تجارب الفوتونات الفردية ذات الخلية المنخفضة (الشكل 5F و5G).
تظهر هذه النتائج معا فائدة البروتوكول الموصوف في جمع وتحليل بيانات FLIM التي ينتجها نظام ريبوغلو في عدة سياقات جزيئية حيوية ذات صلة.
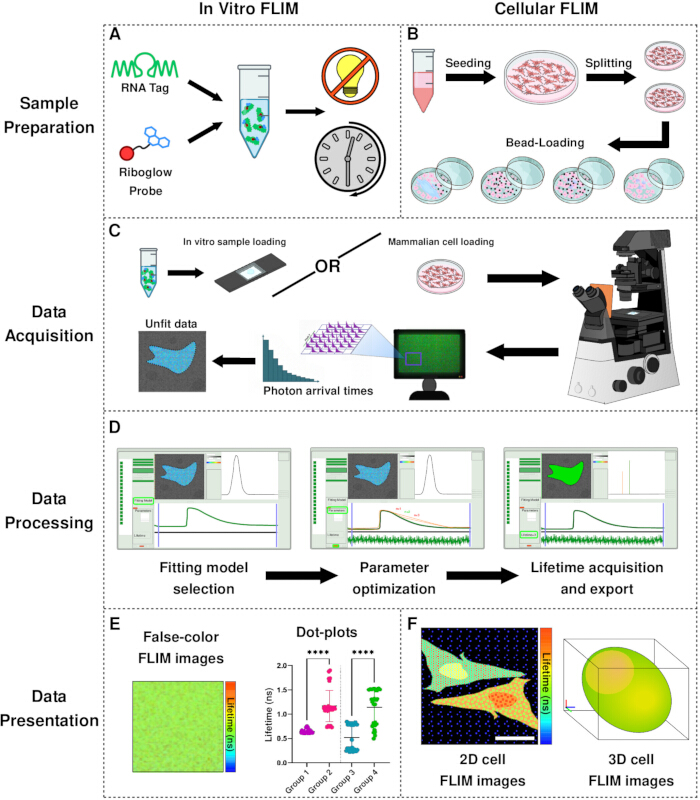
الشكل 1: نظرة عامة على سير العمل التجريبي. أ-ب) سير عمل تحضير العينات لعينات الخلايا المخبرية (أ) والثدييات (ب). ج) سير عمل جمع بيانات FLIM. د) سير عمل معالجة بيانات FLIM. يتم ملاءمة البيانات المجمعة باستخدام إعادة الالتفاف الأسي n، ويحدد عدد معلمات التوافق لكل عملية اقتناء، ويتم تحديد القيمة النهائية للعمر وتصديرها. E-F) عرض بيانات FLIM. تعرض بيانات المختبر (E) كصور FLIM بألوان زائفة أو مخططات نقطية مدى الحياة، وتعرض بيانات الخلية (F) كصور FLIM للخلايا ثنائية الأبعاد أو ثلاثية الأبعاد. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
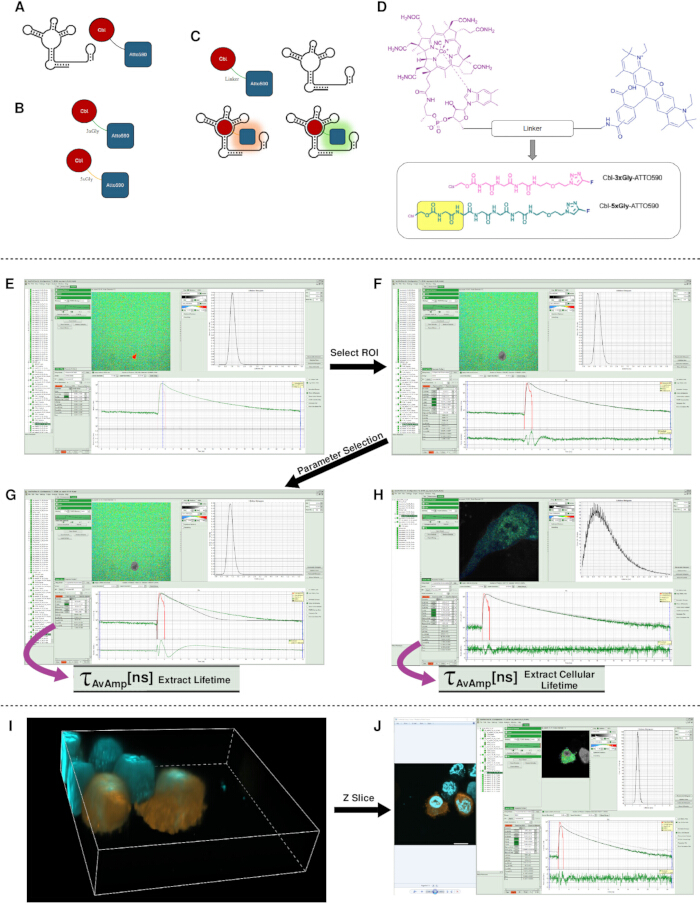
الشكل 2: منصة ريبوغلو، سلسلة الروابط، وسير عمل تركيب FLIM. أ-ب) كرتون لمجسات ريبوغلو وعلامة RNA A. ج) توضيح ارتباط مجبار ريبوغلو بعلامة الحمض النووي الريبي (علامة A)، مما يؤدي إلى زيادة شدة الفلورة وعمر الفلورة عند تكوين المعقد. د) سلسلة روابط ريبوغلو لهذه الدراسة. Cbl (البرقوق) مرتبط تساهميا مع فلوروفور (أزرق) عبر رابط كيميائي متغير. يحتوي 5xGly على بقايا إضافيتين من الجليسين، كما هو مميز باللون الأصفر. E-J) معالجة بيانات FLIM عبر SymPhoTime 64. E-G) يتم استيراد بيانات FLIM إلى SymPhoTime 64 (E). يتم اختيار منطقة نظيفة ذات اهتمام (ROI) (F)، ثم تتناسب منحنيات الانحلال باستخدام نموذج الالتفاف الأسي (G) ذو n أس. يستخدم التوافق الأمثل للحصول على متوسط عمر العمر المرجح بالسعة (τAvAmp). H) تحليل FLIM الخلوي ثنائي الأبعاد للكمية 3xGly المخمدة في خلايا U-2 OS، ويظهر ملاءمة ل n = 3. I) عرض ثلاثي الأبعاد لأحجام خلايا HeLa الموسومة ب 5xGly وDAPI. ج) سير عمل المكدس Z لتحليل FLIM للنواة مقابل السيتوسول، موضحا كيف توجه شرائح Z الكونفوكال المقابلة وضعا دقيقا للعائد على الاستثمار لتركيب مدى الحياة الخاص بالحجرات. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
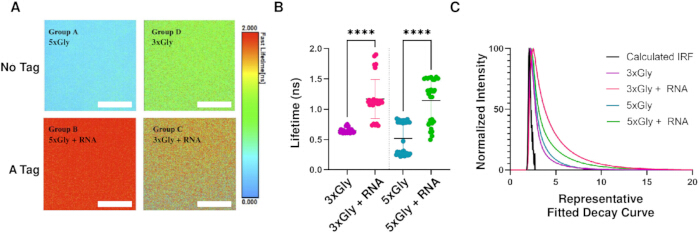
الشكل 3: تقييم عمر التألق لنوعين من المجسات في المختبر +/- RNA. أ) التصور الكمي لمجسات ريبوغلو بواسطة مجهر التصوير مدى الحياة الفلوري (FLIM) في المختبر في وجود أو غياب علامة RNA A. شريط المقياس = 50 ميكرومتر. B) رسم قيم τ AvAmp لعينات 3xGly و5xGly في المختبر ، مع وبدون علامة RNA A. كل نقطة تمثل استحواذا واحدا على FLIM. تمثل أشرطة الخطأ المتوسط وSD. تكشف ANOVA أحادي الاتجاه مع توكي HSD بعد الوقوع عن اختلافات كبيرة في العمر (****p < 0.0001). ج) منحنيات تحلل ممثلة في المختبر لمجسات 5xGly و3xGly مع وبدون RNA-A. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
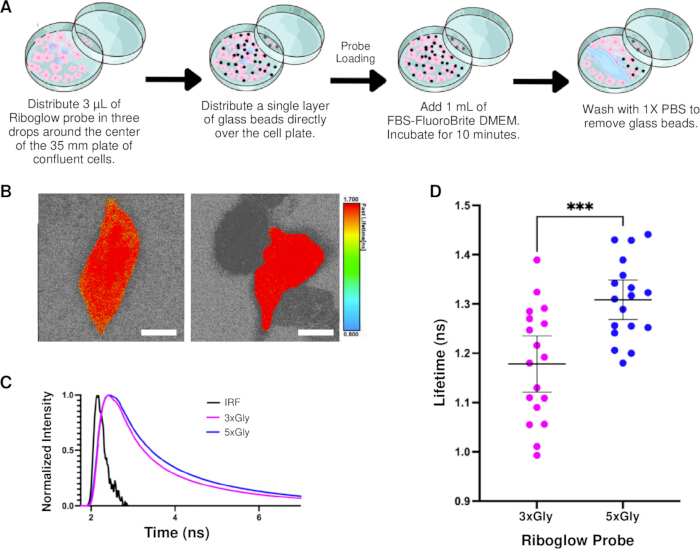
الشكل 4: تصوير فلوري مدى الحياة لخلايا HeLa باستخدام مجسات ريبوغلو 3xGly (المجموعة E) و5xGly (المجموعة F). (أ) نظرة عامة على عملية تحميل المسبار. (ب) صور اكتساب الخلوية لمجموعة E (يسار) وF (يمين). شريط المقياس = 10 ميكرومتر. (ج) منحنيات تحلل العمر الملاءمة المستخرجة من المجموعتين E و F ورسم باستخدام IRF. (د) عمر الفلورة للمجموعة E (n=18 خلية) والمجموعة F (n=18 خلية) في خلايا HeLa التي تظهر أشرطة خطأ متوسطة ومؤشر CI 95٪. اختبار t غير المقترن يكشف عن فرق كبير في عمر الخلايا المحملة ب 3xGly و5xGly،*** p < 0.0005. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
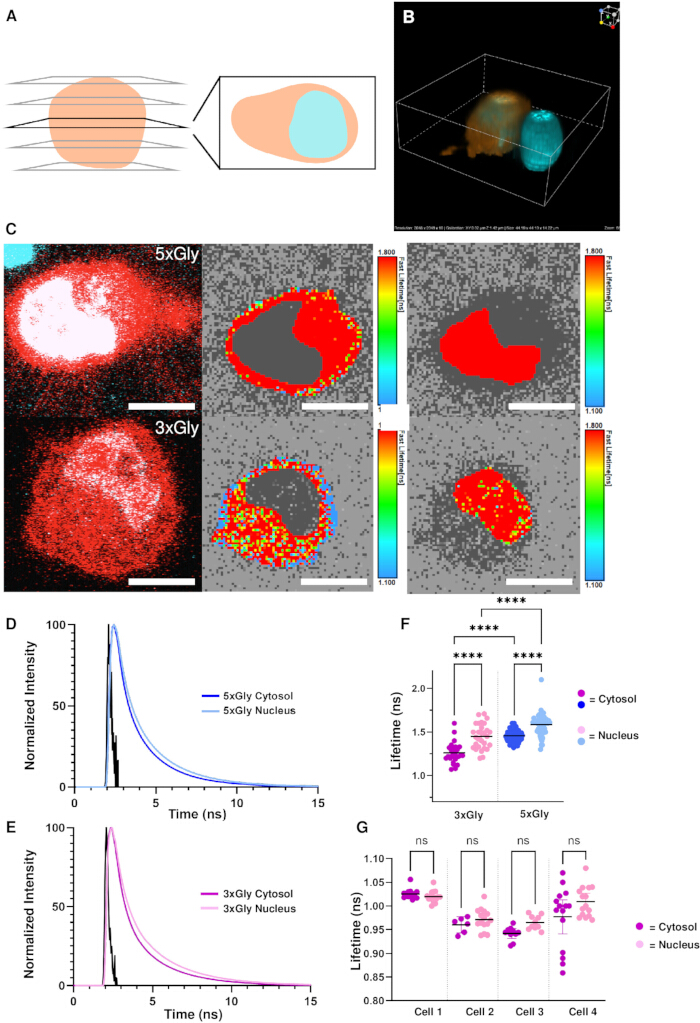
الشكل 5: تحليل FLIM لأقسام تحت الخلية باستخدام مجسات ريبوغلو 3xGly (المجموعة L) و5xGly (المجموعة M). (أ) تمثيل تخطيطي لتصوير المكدس Z. (B) صورة ثلاثية الأبعاد لخلايا HeLa تم الحصول عليها من خلال صور مكدس Z الكونفوكلي. احتوت خلايا هيلا على بقعة نووية زرقاء (سماوي) وتم تحميلها بمسبار ريبوغلو (برتقالي). (ج) تحليل FLIM لخلايا HeLa المحملة بالخرز. تم استخدام صور كونفوكال (العمود الأيسر) كمراجع لاختيار عائد الاستثمار (الأعمدة الوسطى واليمين). أشرطة المقياس = 10 ميكرومتر. (د-شرق) منحنيات تحلل فلورية تمثيلية مستخرجة من ROIs النووية والسيتوسولية لخلايا HeLa المحملة إما ب (D) 3xGly، أو (E) 5xGly. تظهر المنحنيات عدد فوتونات مطبع مقابل زمن التحلل، وكل تراجع يتداخل مع دالة استجابة الجهاز (IRF، الأسود). (F) رسم نقطي يحدد أعمار الفلورة من العائد على المؤشرات النووية مقابل السيتوسولية عبر مجموعتي التجريب. كل نقطة تمثل عائد على الاستثمار الخلوي الواحد. كشف تحليل الخلايا الجوي أحادي الاتجاه مع اضطراب HSD بعد التوكي، فروقا كبيرة في العمر بين النواة والسيتوسول داخل كلا المجموعتين (****p < 0.0001). (G) رسم نقطي لمجموعات Z عمرية الفلورة لأربع خلايا. كل نقطة تمثل عائد عائد واحد مأخوذ من شريحة واحدة من مكدس Z الخلوي. تم التعامل مع العائد على المؤشرات المتعددة المستمدة من نفس الخلية بحذر، لأنها ليست نسخا بيولوجية مستقلة تماما. تم تعريف جميع العائد على الاستثمار باستخدام صورة الكونفوكال كمرجع. تكشف اختبارات T المزدوجة عن عدم وجود فروق ذات دلالة إحصائية في العمر بين النواة والسيتوسول داخل جميع مجموعات Z الخلوية (ns p > 0.05). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
يوفر ريبوغلو-فليم إطارا للتصوير الكمي للحمض النووي الريبي من خلال الاستفادة من قراءات الفلورة مدى الحياة. يعتمد التطبيق الناجح لهذا البروتوكول بشكل حاسم على التحكم الدقيق في اكتساب الفوتون، وتركيب الانحلال، وأخذ العينات غير المتحيز. يجب موازنة عدد الفوتونات لضمان إحصائيات كافية لإعادة الالتفاف الأسي n-موثوقة مع تجنب تشبع الكاشف، وتأثيرات التراكم، والتبييض الضوئي الذي يقلل بشكل مصطنع من الأعمار المستخرجة. في الواقع، غالبا ما تؤدي أعداد الفوتونات غير الكافية إلى فشل التوافقات، خاصة عند استخدام عائد المؤشرات الصغيرة في تصوير الخلايا مثل محاولة تحليل الحجرات الخلوية الصغيرة، بينما يؤدي تدفق الفوتونات الزائد إلى ضغط منحنيات التحلل بسبب قيود الربط في اكتشاف TCSPC. لذا فإن اختيار أوقات التوقف المناسبة، وأرقام الإطارات، وقوة الليزر بناء على الأهداف التجريبية أمر ضروري. يحدد وقت التوقف ورقم الإطار معا ميزانية الفوتون الإجمالية من خلال التحكم في مدة أخذ عينات كل بكسل وعدد مرات إعادة النظر إلى مجال الرؤية على التوالي، بينما تحدد طاقة الليزر معدل الإثارة وبالتالي عائد الفوتون لكل فترة استقامة، مع عواقب مباشرة على تحويل الإشارة إلى ضوضاء، والتبييض الضوئي، والتراكم. لا يقل أهمية عن تجنب التوافق الزائد لمنحنيات الانحلال عن طريق تقليل معلمات النموذج وتأكيد البواقي العشوائية، حيث أن الإفراط في المعامل يميل بشكل منهجي إلى انخفاض قيم العمر الافتراضي. اختيار مقياس العمر هو اعتبار تحليلي مهم، حيث تعكس متوسطات الوزن الكبير (τAvAmp) والشدة (τAvInt) جوانب مختلفة من الانحلال الأسي المتعدد ولا يمكن تبادلها. تماشيا مع الإرشادات السابقة، يستخدم τAvAmp هنا لأنه يمثل بشكل أكثر مباشرة المساهمات الجزئية لمكونات العمر وهو أكثر ملاءمة لحل البيئات البيولوجية غير المتجانسة23. يتطلب تركيب الالتفاف الموثوق تحديد دالة استجابة الجهاز (IRF) بدقة، خاصة عند حل المكونات ذات العمر القصير. يستخدم IRF المحسوب للحفاظ على اتساق التوافق التجريبي عبر الزمن، لكنه قد يسبب خطأ منهجيا إذا انحرف عن استجابة الجهاز الحقيقية. يجب إجراء قياس دوري لمؤشر IRF باستخدام معيار يوديد البوتاسيوم للتحقق من التوافق بين IRF المقاسة والمحسوبة. بالنسبة للتجارب الخلوية، يتطلب أخذ العينة غير المتحيزة تقييم صحة الخلية وتحميل المجسات قبل الاستخلاص مدى الحياة، حيث أن الاستبعاد اللاحق بناء على نتائج الحياة يدخل تحيز الاختيار. يدخل تحميل الخرز تغيرا إضافيا في قدرة البقاء، ويجب أن تدرج فقط الخلايا التي تظهر شكلا طبيعيا وإشارة فلورية مستقرة كما يحددها التصوير الساطع أو الكونفوكال في التحليل. يجب استبعاد الهياكل غير المنتظمة مثل الدائرة، أو البلبية، أو الخلايا المعتمة22. من خلال تجربتنا، يتم التصوير بشكل أفضل خلال حوالي 3 ساعات من تحميل الخرزات لتقليل الإجهاد الخلوي، الذي يمكن أن يغير قياسات عمر الفلورة مع مرور الوقت.
يمثل تركيب منحنى التحلل أكثر تحدي استكشاف الأخطاء شيوعا في تجارب ريبوغلو-فليم. يمكن تحديد التوافقات الفاشلة من خلال معاملات غير فيزيائية مثل سعات التوافق السالبة (n < 0 في ملاءمات تحليل FLIM)، أو ضعف التداخل بين التعديلات المتوافقة والمقاسة، أو البواقي المنظمة. في كثير من الحالات، يمكن تحسين جودة التوافق عن طريق تعديل حدود التوافق الزمني لاستبعاد الضوضاء منخفضة الإشارة أو الضوضاء المتأخرة مع الحفاظ على المنطقة الخطية للتراجع على مقياس لوغاريتمي. على الرغم من أن هذا النهج يقلل قليلا من دقة العمر الافتراضي، إلا أنه يؤثر بشكل طفيف على متوسط العمر المستخرج ويسمح بالاحتفاظ بمجموعات بيانات قابلة للاستخدام. عندما تستمر إخفاقات التركيب رغم عدد كاف من الفوتونات وتحسين الحدود، يكون استبعاد الاقتناء مبررا. في الدراسات الخلوية واسعة النطاق، يمكن لتعديلات البروتوكول مثل اختيار الخلايا مسبقا عبر التصوير الكونفوكالي وأتمتة اكتساب FLIM متعدد النقاط أن تزيد بشكل كبير من معدل الإنتاجية، رغم أن هذه الطرق تتطلب تحكما مستقرا في التركيز باستخدام نظام التركيز المثالي للمجهر لتقليل انحراف Z خلال جلسات التصوير الممتدة. يتم عرض هذا البروتوكول على نظام Nikon Ti2 Eclipse AX مع أجهزة PicoQuant TCSPC، لكن مبادئ الاكتساب والتحليل العامة قابلة للنقل إلى منصات FLIM الأخرى مثل أنظمة Leica SP8 أو Abberior STEDYCON بشرط الحفاظ على التحكم المكافئ في عد الفوتونات، ودقة التوقيت، وتكوين الكاشف. بينما يستخدم SymPhoTime 64 هنا للتحليل، فإن مجموعات بيانات FLIM المصدرة متوافقة مع حزم برامج التحليل الأخرى التي تدعم الصيغ المبنية على TCSPC، ويمكن للمستخدمين تعديل سير العمل وفقا لذلك.
يجب أخذ عدة قيود في الطريقة في الاعتبار عند تصميم التجارب. أولا، لا يمكن نقل المناطق ذات الاهتمام المحددة أثناء التصوير الكونفوكالي مباشرة إلى برامج تحليل FLIM، بل يجب إعادة رسمها يدويا لكل مجموعة بيانات FLIM، مما يضيف وقت تحليل إضافي وتغير محتمل يعتمد على المستخدم. بالإضافة إلى ذلك، تتطلب سير عمل معالجة FLIM الحالية تحليلا فرديا لشرائح المكدس Z لأن التوافق الحجمي مدى الحياة غير مدعوم حاليا في SymPhoTime 64، مما يزيد من وقت التحليل ويتجزأ إحصائيات الفوتونات عبر الشرائح. يقلل هذا التفتت من عدد الفوتونات الفعال لكل قياس ويمكن أن يقلل من دقة التركيب في المناطق المعتمة أو الحجرات الصغيرة. يصبح هذا القيد مؤثرا في التصوير الخلوي ثلاثي الأبعاد حيث يؤدي انخفاض عدد الفوتونات في كل شريحة وزيادة تعقيد النظام إلى تقليل دقة العمر الافتراضي. نظرا لأن عدة عائد على الاستثمار غالبا ما يتم استخراجها من نفس الخلية عبر الشريحات، فإن هذه القياسات ليست مستقلة تماما، مما يقلل من التكرارات البيولوجية الفعالة ويجب أخذها في الاعتبار في التفسير الإحصائي. تماشيا مع هذا القيد، قد تخفي أحجام العينات الصغيرة في التجارب ثلاثية الأبعاد فروقا ذات معنى بيولوجي في العمر تظهر في تحليلات الخلية الواحدة أو ثنائية الأبعاد بسبب انخفاض عدد الفوتونات في العائد على المؤشرات المحددة. بالإضافة إلى ذلك، من الصعب تركيب المواقع الفرعية الخلوية الصغيرة جدا أو الخافتة بشكل موثوق عندما تكون الدقة المكانية أو كثافة الفوتونات غير كافية، مما يؤكد أكثر على المقايضة بين التفاصيل المكانية والدقة مدى الحياة مع زيادة تعقيد العينة.
على الرغم من هذه القيود، يعالج هذا البروتوكول حاجة غير ملباة من خلال توفير سير عمل مفصل وموحى لتنفيذ ريبوغلو-فليم عبر أنواع العينات. بينما تم تطبيق ريبوغلو سابقا باستخدام قياسات تعتمد على الشدة، يتيح ريبوغلو-فليم قراءة كمية وحساسة للبيئة مستقلة إلى حد كبير عن تركيز المجس ومستوى تعبير الحمض النووي الريبي. تم الإبلاغ عن عمر الفلورة في دراسات سابقة كميزة مقارنة بالأساليب القائمة على الشدة، بما في ذلك تقليل الحساسية لتركيز المجسات، والتبييض الضوئي، واختلافات المسار البصري. ومن المهم أنه لم يتم نشر أي بروتوكول موحد لاكتساب وتحليل ريبوغلو-فليم من قبل، وسير العمل المفصل المعروض هنا يضع مجموعة من الاعتبارات التجريبية لجمع البيانات غير المتحيز، وملاءمة الانضباط، والتفسير عبر الأنظمة المختبرية والخلوية والثلاثية الأبعاد.
توفر بروتوكول ريبوغلو-فليم المعتمد يوسع مجموعة الأدوات التجريبية لدراسة ديناميكيات الحمض النووي الريبي، وتحديد موقعه، وتنظيمه في الخلايا الحية. هذا النهج مناسب جدا للتجارب التي تتطلب مقارنات كمية عبر أقسام تحت الخلية أو نقاط زمنية أو ظروف تجريبية، وكذلك لتصوير RNA متعدد الإرسال باستخدام توقيعات عمر متعامدة. بعيدا عن علم الأحياء الأساسي للحمض النووي الريبي، يمكن تطبيق هذا البروتوكول بسهولة على دراسات معالجة الحمض النووي الريبي، ونقله، والاستجابة للإجهاد، وتنظيم النسخ في نماذج بيولوجية متزايدة التعقيد. مع استمرار تطور أجهزة وتحليل أجهزة FLIM، توفر المنهجية التي تم وضعها هنا أساسا لتمديد تصوير الحمض النووي الريبي القائم على العمر إلى أنظمة ذات أبعاد أعلى وأنظمة في الحي.
الإفصاحات
لا يوجد لدى المؤلفين تضارب مصالح للكشف عنها.
شكر وتقدير
يحظى العمل في مختبر براسلمان بدعم من المعاهد الوطنية للصحة (R35GM150823 إلى E.B.)، ومؤسسة لوس (E.B.)، وقسم الكيمياء في جامعة جورجتاون (زمالة إسبنشايد ل L.K.S.). كان هذا العمل جزءا من دورة مختبرية CHEM 4505 في جامعة جورجتاون. شارك جميع الطلاب المسجلين في CHEM 4505 في جمع البيانات وتحليلها وتطويرها وهم مدرجون كمؤلفين مشاركين. يشكر جميع المؤلفين سانوجا موهاناراج والدكتور رودريغو مايلارد على دعمهم خلال تطوير هذه المخطوطة. كما يشكر المؤلفون إيمرسون بوغز والدكتور كلايتون هازليت على ملاحظاتهم التقنية.
توفر البيانات
سيتم توفير جميع مجموعات البيانات وملفات التحليل في مستودع (مجلد صندوق متاح للجمهور مع الإشارة إلى هذه المخطوطة) عند النشر.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 15 mL centrifuge tube | Abdos | P10402 | يستخدم لزراعة الخلايا ولبناء أداة تحميل الخرز |
| Cbl-3xGly-ATTO590 | N/A | N/A | يستخدم لاكتشاف الحمض النووي الريبي في نظام Riboglow، معلومات التوليف متاحة هنا: https://doi.org/10.1021/acschembio.5c00917 |
| Cbl-5xGly-ATTO590 | N/A | N/A | يستخدم لاكتشاف الحمض النووي الريبي في نظام Riboglow، معلومات التوليف متاحة هنا: https://doi.org/10.1021/acschembio.5c00918 |
| Cell detachment media | Gibco | 12605-28 | يستخدم لفصل الخلايا ونقلها |
| Cell Imaging Dishes | Ibidi | 81218-200 | يستخدم لتصوير الخلايا الحية |
| Cell Microscopy DMEM | Gibco | A1896701 | يستخدم لتصوير الخلايا الحية |
| Confocal Microscope System | Nikon | AX | يستخدم لتصوير الخلايا الحية بالمجهر الليزري |
| DMEM | Gibco | 1195-092 | يستخدم لزراعة الخلايا الثديية |
| FBS | Cytiva | SH30910.03 | يستخدم لمكمل مصل DMEM |
| Fluorescence lifetime imaging (FLIM) analysis software | PicoQuant | SymPhoTime 64, version 2.9, build 5818 | يستخدم لتحليل FLIM |
| Glass beads | Millipore Sigma | G4649 | يستخدم لتحميل الخرز Riboglow في الخلايا الحية |
| Glass Coverslips | VWR | 48368 062 | يستخدم لتصوير In vitro. |
| HEPES | Sigma | H3375 | يستخدم لعمل محلول RNA. |
| High Yield RNA Synthesis Kit | Thermo Scientific | K0441 | مجموعة توليف الحمض النووي الريبي عالي العائد |
| Hybrid Photomultiplier Detector | PicoQuant | PMA Hybrid Series | يستخدم لكشف الفوتون لقياس عمر الفلورة. |
| KCl | Fisher Scientific | BP366 | يستخدم لعمل محلول RNA. |
| Live Cell Nuclei Stain | Invitrogen | R37605 | يستخدم لتلطيخ النوى الخلوية أثناء تصوير الخلايا الحية |
| Mammalian Cell Cryo Tubes | Fisher Scientific | 12-567-501 | يستخدم لتخزين الخلايا الثديية |
| MgCl2 | Sigma | M8266 | يستخدم لعمل محلول RNA. |
| Microcentrifuge Tubes | Thermo Scientific | 90410 | يستخدم بشكل عام في أعمال الزراعة الخلوية وزراعة الخلايا |
| Microscope Base | Nikon | Ti2 Eclipse | يستخدم للتصوير في المختبر والتصوير الخلوي. |
| Microscope Objective | Nikon | N Plan Apochromat | يستخدم للتصوير في المختبر والتصوير الخلوي. |
| Microscope Operation Software/Image Acquisition and Analysis Software | Nikon | NIS-Elements, version 6.20.02. | |
| Microvolume Spectrophotometer | Thermo Scientific | ND-2000 | يستخدم لتحديد تركيز الحمض النووي الريبي والصفاء |
| Multichannel Event Timer | PicoQuant | MultiHarp 150 | يستخدم لـ TCSPC لاستخراج عمر الفلورة من العينات في المختبر والخلوية. |
| NaCl | Fisher Scientific | BP358 | يستخدم لعمل محلول RNA. |
| PBS, 1X | Corning | 21-040-CV | يستخدم لغسل الخلايا وإزالة الخرز |
| Pulsed Diode Laser and Laser Combining Unit | PicoQuant | Sepia PDL 828, PicoQuant LCU | يستخدم لتحفيز الليزر للعينات في المختبر والخلوية. |
| RNA Cleanup Kit | New England Biolabs | T2050L | مجموعة تنقية الحمض النووي الريبي |
| RNAse denaturant | Invitrogen | AM9780 | يستخدم لإعداد بيئة خالية من RNAse |
| Tissue Culture Dishes | Fisher Scientific | FB012923 | يستخدم لزراعة الخلايا العامة والصيانة |
المراجع
- Bertrand, E., Chartrand, P., Schaefer, M., Shenoy, S. M., Singer, R. H., et al. Localization of ASH1 mRNA Particles in Living Yeast. Molecular Cell. 2 (4), 437-445 (1998).
- Johansson, H. E., Liljas, L., Uhlenbeck, O. C. RNA Recognition by the MS2 Phage Coat Protein. Seminars in Virology. 8 (3), 176-185 (1997).
- Braselmann, E., Rathbun, C., Richards, E. M., Palmer, A. E. Illuminating RNA Biology: Tools for Imaging RNA in Live Mammalian Cells. Cell Chemical Biology. 27 (8), 891-903 (2020).
- Paige, J. S., Wu, K. Y., Jaffrey, S. R. RNA Mimics of Green Fluorescent Protein. Science. 333 (6042), 642-646 (2011).
- Filonov, G. S., Moon, J. D., Svensen, N., Jaffrey, S. R. Broccoli: Rapid Selection of an RNA Mimic of Green Fluorescent Protein by Fluorescence-Based Selection and Directed Evolution. Journal of the American Chemical Society. 136 (46), 16299-16308 (2014).
- Song, W., et al. Imaging RNA polymerase III transcription using a photostable RNA–fluorophore complex. Nature Chemical Biology. 13 (11), 1187-1194 (2017).
- Dolgosheina, E. V., et al. RNA Mango Aptamer-Fluorophore: A Bright, High-Affinity Complex for RNA Labeling and Tracking. ACS Chemical Biology. 9 (10), 2412-2420 (2014).
- Chen, X., et al. Visualizing RNA dynamics in live cells with bright and stable fluorescent RNAs. Nature Biotechnology. 37 (11), 1287-1293 (2019).
- Sunbul, M., et al. Super-resolution RNA imaging using a rhodamine-binding aptamer with fast exchange kinetics. Nature Biotechnology. 39 (6), 686-690 (2021).
- Chen, M., et al. A molecular beacon-based approach for live-cell imaging of RNA transcripts with minimal target engineering at the single-molecule level. Scientific Reports. 7 (1), 1550(2017).
- Raj, A., Van Den Bogaard, P., Rifkin, S. A., Van Oudenaarden, A., Tyagi, S. Imaging individual mRNA molecules using multiple singly labeled probes. Nature Methods. 5 (10), 877-879 (2008).
- Bratu, D. P., Cha, B. -J., Mhlanga, M. M., Kramer, F. R., Tyagi, S. Visualizing the distribution and transport of mRNAs in living cells. Proceedings of the National Academy of Sciences. 100 (23), 13308-13313 (2003).
- Zuo, F., et al. Imaging the dynamics of messenger RNA with a bright and stable green fluorescent RNA. Nature Chemical Biology. 20 (10), 1272-1281 (2024).
- Grün, F., et al. Super-Resolved Protein Imaging Using Bifunctional Light-Up Aptamers. Angewandte Chemie International Edition. 63 (51), e202412810(2024).
- Braselmann, E., et al. A multicolor riboswitch-based platform for imaging of RNA in live mammalian cells. Nature Chemical Biology. 14 (10), 964-971 (2018).
- Sarfraz, N., Moscoso, E., Oertel, T., Lee, H. J., Ranjit, S., et al. Visualizing orthogonal RNAs simultaneously in live mammalian cells by fluorescence lifetime imaging microscopy (FLIM). Nature Communications. 14 (1), 867(2023).
- Sarfraz, N., Shafik, L. K., Stickelman, Z. R., Shankar, U., Moscoso, E., et al. Evaluating Riboglow-FLIM probes for RNA sensing. RSC Chemical Biology. 5 (2), 109-116 (2024).
- Sarfraz, N., et al. Establishing Riboglow-FLIM to visualize noncoding RNAs inside live zebrafish embryos. Biophysical Reports. 3 (4), 100132(2023).
- Datta, R., Heaster, T. M., Sharick, J. T., Gillette, A. A., Skala, M. C. Fluorescence lifetime imaging microscopy: fundamentals and advances in instrumentation, analysis, and applications. Journal of Biomedical Optics. 25 (07), 1(2020).
- Stickelman, Z., Sarfraz, N., Rice, M. K., Lambeck, B. J., Milkovich, S., et al. Expanding the Riboglow-FLIM Toolbox with Different Fluorescence Lifetime-Producing RNA Tags. Biochemistry. 64 (11), 2429-2438 (2025).
- Shafik, L. K., et al. Evaluating Linker Architecture in RNA-Detecting Riboglow Probes and Effects on Fluorescence Turn-On. ACS Chemical Biology. 21 (2), 371-379 (2026).
- Cialek, C. A., Galindo, G., Koch, A. L., Saxton, M. N., Stasevich, T. J. Bead Loading Proteins and Nucleic Acids into Adherent Human Cells. Journal of Visualized Experiments. (172), e62559(2021).
- Sarfraz, N., Braselmann, E. Practical guide to fluorescence lifetime imaging microscopy. Molecular Biology of the Cell. 36 (6), tp1(2025).
إعادة الطباعة والأذونات
