تقدم هذه المقالة بروتوكولاً محسناً لعملية التعداء العكسي (reverse transfection) من أجل التوصيل الفعال للحمض النووي الريبوزي المرسال (mRNA) لإنزيم تيلوميراز العكسي البشري (hTERT mRNA) المعدل النوكليوزيدي إلى الخلايا الليفية البشرية الهرمة. يؤدي التغليف المسبق لأسطح الزرع بمعقدات hTERT mRNA-lipid إلى تعزيز عملية الامتصاص، مما يسمح بتنشيط التيلوميراز، وتمديد التيلوميرات، وتجديد الخلايا جزئياً. وفي النهاية، تعود المزارع الخلوية إلى حالة الهرم أو الأزمة دون أن تتحول إلى خلايا خالدة.
مقالة منهجية
بروتوكول مُحسَّن للنقل العكسي لمرسال الحمض الريبي (mRNA) الخاص بالتيلوميريز إلى الخلايا الليفية البشرية في مراحل الشيخوخة المبكرة
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يرتبط الهرم الخلوي بتغيرات عميقة في الفسيولوجيا الخلوية، بما في ذلك انخفاض سيولة الغشاء، وضعف النقل الإندوسومي، وتضاؤل القدرة على الالتقام الخلوي، وزيادة نشاط إنزيم RNase خارج الخلية، وكل هذه العوامل تعيق التوصيل الفعال للـ mRNA. وقد حدت هذه العوائق من تطبيق النهج القائمة على الـ RNA في الخلايا الهرمة، لا سيما عند توصيل النسخ العلاجية الكبيرة. يصف هذا البروتوكول طريقة محسنة للترانسفكشن العكسي (reverse-transfection) للتوصيل الفعال للـ RNA المرسال (mRNA) المعدل إلى الخلايا الليفية البشرية الهرمة. وعلى الرغم من استخدام mRNA الخاص بإنزيم hTERT (نسخ عكس النسخ للتيلوميراز البشري) كنسخة نموذجية، إلا أن سير العمل قابل للتطبيق بشكل واسع على أنواع أخرى من mRNA. وخلافاً لطرق الترانسفكشن التقليدية، التي تُضاف فيها معقدات الـ RNA والليبيدات إلى وسط الزرع بعد التصاق الخلايا، يقوم الترانسفكشن العكسي بترسيب المعقدات على سطح الزرع قبل استزراع الخلايا، مما يتيح تفاعلاً مباشراً بين الخلايا الملتصقة ومعقدات الترانسفكشن. ولتحقيق أقصى قدر من كفاءة الترانسفكشن، يتضمن البروتوكول استخدام mRNA معدل النيوكليوزيدات يحتوي على pseudouridine و 5-methylcytidine، وذيول poly(A) ممددة، وتوقيتاً محسناً لتكوين المعقدات، وتثبيط إنزيم RNase، ورفعاً مؤقتاً لـ pH الإندوسوم باستخدام chloroquine، وزيادة كثافة استزراع الخلايا، وفترات حضانة ممددة. وباستخدام هذا النهج، تم تحقيق كفاءات ترانسفكشن تتراوح بين 50%–80% تقريباً في الخلايا الليفية الهرمة بعد توصيل نسخة hTERT mRNA بحجم 5 kb. وقد رُصد ذروة نشاط التيلوميراز بعد 24–48 h من الترانسفكشن. وأدت دورة ترانسفكشن واحدة إلى استطالة ملموسة في التيلوميرات، بينما أدى إجراء ثلاث عمليات ترانسفكشن متتالية إلى تمديد جوهري ولكن محدود للتيلوميرات. وكان من الممكن اكتشاف تراجع جزئي في الأنماط الظاهرية المرتبطة بالهرم في غضون 72–96 h، بما في ذلك انخفاض نشاط β-galactosidase المرتبط بالهرم، وانخفاض تعبير p16 و p21، واستعادة مورفولوجيا الخلايا، وتمديد العمر التكراري. وقد تحلل hTERT mRNA الموصل في غضون 72–96 h، ولم يُلاحظ حدوث تخليد للخلايا. يوفر هذا البروتوكول نهجاً عملياً للتوصيل المؤقت للـ mRNA إلى الخلايا الهرمة، ويمكن تكييفه مع مجموعة واسعة من أنواع الخلايا والأنواع البيولوجية.
المقدمة
يمثل نهج التعدي العكسي (reverse transfection) تكيفاً منهجياً حاسماً للخلايا الهرمة، حيث يتغلب على العوائق الأساسية التي تفرضها هذه الخلايا أمام طرق التعدي القياسية. وبخلاف التعدي الأمامي، حيث يتم زرع الخلايا مسبقاً وتركها لتلتصق قبل إضافة معقدات التعدي، يتضمن التعدي العكسي إضافة خلايا معلقة مباشرة فوق معقدات hTERT mRNA-lipid المكونة مسبقاً. وتزيد هذه التقنية بشكل كبير من كفاءة التعدي في الخلايا الهرمة من خلال زيادة التعرض لمعقدات التعدي إلى أقصى حد خلال مرحلة الالتصاق الحرجة، وهي المرحلة التي يكون فيها إعادة تشكيل الغشاء في أوج نشاطه.
يكمن التحول المفاهيمي الجوهري في هذا البروتوكول في التعامل مع الخلايا الهرمة كمشكلة توصيل متميزة، وليس مجرد نسخ يصعب نقل الجينات إليها من الخلايا الشابة. ففي حالة الهرم، تؤدي التغيرات الشاملة في تركيب ليبيدات الغشاء، بما في ذلك الفوسفوليبيدات، والليبيدات السفينجولينية، والكوليسترول، إلى تغيير سيولة الغشاء، وانحنائه، والتفاعلات بين البروتينات والليبيدات، بينما تساهم في النمط الظاهري الإفرازي المرتبط بالهرم1,2,3. كما تظهر الخلايا الهرمة انخفاضاً في عملية إدخال المستقبلات الخلوية بوساطة الكلاثرين والكافيولاي، وتغيراً في مسارات الإدخال الخلوي، وهو ما يعود جزئياً إلى تثبيط تعبير amphiphysin-1 وتغيرات تعويضية في تعبير caveolin، مما يضعف الالتقاط والإشارات المعتمدة على المستقبلات4,5,6. وبالتوازي مع ذلك، يصاب محور الجسيم الداخلي المتأخر-الليسوسوم الذي ينظمه Rab7 والشبكة الأوسع للجسيمات الداخلية والالتهام الذاتي والليسوسومات (EAL) بخلل وظيفي، حيث يعمل Rab7 كمتحكم رئيسي في نضج الجسيمات الداخلية الليسوسومية والاندماج بين الجسيم البلعمي الذاتي والليسوسوم، وهي عمليات تضطرب في حالات الشيخوخة والتنكس العصبي7.
عادةً ما تزيد الخلايا الهرمة من تنظيم مكونات متعددة في نظام المعالجة والتكيف الليزوزومي (LYPAS)، بما في ذلك التخليق الحيوي لليزوزومات الذي يحفزه TFEB/TFE3 والبلعمة الذاتية بوساطة المرافقات، مما يؤدي إلى زيادة الكتلة الليزوزومية. ومع ذلك، غالبًا ما تظهر الليزوزومات الفردية ارتفاعًا في الأس الهيدروجيني (pH) للتجويف الداخلي، وتلفًا في الغشاء، وتغيرًا في القدرة التحليلية للبروتينات، مما يساهم في حدوث خلل وظيفي ليزوزومي على الرغم من زيادة وفرتها8,9,10,11. وبشكل جماعي، يمكن لهذه التغييرات أن توجه المواد التي يتم إدخالها إلى داخل الخلية بشكل أكثر كفاءة نحو مقصورات الاندوزوم-ليزوزوم التحللية، مما يزيد من احتمالية تحلل RNA أو البروتين المنقول قبل تحرره بفعالية في العصارة الخلوية9,10,11. يستهدف التعداء العكسي مباشرةً النافذة الزمنية المبكرة التي تعيد فيها الأغشية تشكيل نفسها أثناء الالتصاق، مما يفرض تلامسًا مستدامًا وعالي الألفة بين الخلايا ومعقدات mRNA-الليبيد، وهو ما يتجاوز جزئيًا على الأقل عملية الالتقام الخلوي المتضررة في الحالة المستقرة في الخلايا الهرمة الملتصقة تمامًا4,5,6,12.
من جانب تصميم الـ RNA، يفترض البروتوكول أنه في سياق الشيخوخة، لا تكفي خطوط الأساس البسيطة المكونة من غطاء (cap) وذيل (tail): ويُعتبر التعديل الكامل للنوكليوسيدات (على سبيل المثال، pseudouridine أو N1‑methylpseudouridine بالإضافة إلى 5‑methylcytidine) أمراً غير قابل للتفاوض لفصل الترجمة عن استشعار مستقبلات Toll-like الإندوزومية وتحفيز إنترفيرون النوع I. وقد أظهرت الأعمال التأسيسية أن دمج النوكليوسيدات المعدلة في الـ RNA يثبط تنشيط TLR3 وTLR8 وTLR7 ويقلل بشكل ملحوظ من إنتاج السيتوكينات في الخلايا التغصنية، مما يوفر أساساً ميكانيكياً لانخفاض المناعة الفطرية لمنصات mRNA المعدلة بالنوكليوسيدات الحالية13. وتؤكد المراجعات الحديثة للقاحات mRNA–LNP وأدوية mRNA على الهندسة المنسقة للغطاء 5′، والمناطق غير المترجمة (UTRs)، والتسلسل المشفر، وذيل poly(A) لزيادة الاستقرار والترجمة in vivo مع تقليل تنشيط المناعة الفطرية إلى أدنى حد14. وبوجه خاص، ظهر طول وبنية ذيل poly(A) كمحددات رئيسية لاستقرار mRNA المنسوخ in vitro ومخرجات الترجمة، مما دفع نحو تصميمات poly(A) ممتدة أو مهندسة في mRNA العلاجي15.
وبالإضافة إلى ذلك، يتضمن البروتوكول صراحةً توفير حماية ضد إنزيمات RNases خارج الخلوية والجسيمية خلال مرحلتي تكوين المعقد والامتصاص، إلى جانب تحديد نافذة للهروب من الجسيمات الداخلية باستخدام عامل مؤقت محب لليستوسومات مثل chloroquine16,17. لقد استُخدم chloroquine لفترة طويلة كمسبار وظيفي للحواجز الجسيمية، ويمكنه زيادة الارتباط بالهدف وإسكات الجينات بشكل ملحوظ بواسطة siRNA أو قليلات النوكليوتيد المضادة للمعنى، وذلك عن طريق تعزيز تمزق غشاء الجسيمات الداخلية وهروب حمولة الحمض النووي إلى العصارة الخلوية18. وفي الوقت ذاته، أظهر التصوير فائق الدقة وتصوير الخلايا الحية لـ mRNA الذي يتم توصيله بواسطة LNPs أن التوصيل الفعال يواجه عائقًا شديدًا عند أحداث الهروب النادرة من الجسيمات الداخلية المبكرة/المعاد تدويرها، بدلاً من أن يكون العائق في عملية الامتصاص الأولية بحد ذاتها، مما يؤكد أهمية الهندسة المتعمدة لخطوة الهروب من الجسيمات الداخلية في العلاجات القائمة على mRNA19.
تخلق هذه التغيرات المرتبطة بالشيخوخة في ديناميكيات الغشاء، والاتجار الخلوي بالالتقام، والمعالجة الليزوزومية، وتنشيط المناعة الفطرية، مجتمعةً، عوائق كبيرة أمام التوصيل الفعال لـ mRNA. وقد طُورت استراتيجية عفك التعداء (reverse-transfection) الموصوفة هنا لمعالجة هذه القيود من خلال الجمع بين هندسة mRNA المحسّنة، وحماية RNase، وتعزيز الهروب الإندوسومي، والتعريض المباشر للخلايا الملتصقة لمركبات mRNA والليبيدات مسبقة التكوين. وعلى الرغم من استخدام hTERT mRNA كحموله نموذجية، فإن سير العمل هذا قابل للتطبيق على نطاق واسع لتوصيل نسخ mRNA علاجية كبيرة أخرى إلى المجموعات الخلوية الهرمة والتي يصعب تعداؤها20,21,22.
البروتوكول
1. النسخ المختبري In vitro لـ mRNA الخاص بـ hTERT
- النسخ In vitro (IVT) باستخدام ARCA و ΨUTP
- قم بتحضير تفاعل IVT بحجم 20 µL وفقاً لـ الجدول 1. يمكن زيادة حجم التفاعل خطياً إذا كانت هناك حاجة إلى إنتاجية أكبر.
- اجمع كافة مكونات التفاعل باستثناء T7 RNA polymerase في أنبوب خالٍ من RNase. أضف T7 RNA polymerase في النهاية، وامزج بلطف، ثم قم بطرد مركزي قصير للأنبوب.
- حضّن التفاعل عند 37 °C لمدة تتراوح بين 0.5–4 ساعات.
ملاحظة: اضبط وقت الحضن وفقاً لطول القالب. حضّن التفاعلات التي تحتوي على قوالب قصيرة (حوالي 500 bp) لمدة 30 دقيقة تقريباً، والتفاعلات التي تحتوي على قوالب أكبر (حوالي 4 kb) لمدة 3–4 ساعات.
- المعالجة بـ DNase
- أضف 1 µL من DNase I الخالي من RNase مباشرة إلى خليط تفاعل IVT.
- حضّن التفاعل عند 37 °C لمدة 15 دقيقة.
ملاحظة: يجب إجراء المعالجة بـ DNase مباشرة في تفاعل IVT دون تنقية مسبقة لـ mRNA المُصنّع.
- تنقية mRNA
- أضف 115 µL من H₂O الخالي من النيوكلييز لتخفيف خليط التفاعل.
- قم بتنقية mRNA باستخدام طقم تنقية RNA وفقاً لتعليمات الشركة المصنعة.
- استخلص mRNA المنقى في 20–30 µL من H₂O الخالي من النيوكلييز.
- قس نقاء mRNA باستخدام القياس الطيفي وتحقق من سلامة RNA عن طريق الرحلان الكهربائي على هلام أغاروز مُنـزِع للبروتينات بتركيز 1.0–1.5% أو هلام بولي أكريلاميد منخفض التركيز.
- إضافة ذيل Poly(A)
- قم بتحضير تفاعل إضافة ذيل poly(A) بحجم 50 µL وفقاً لـ الجدول 2. امزج مكونات التفاعل بلطف وحضّنها عند 37 °C لمدة 30–60 دقيقة.
ملاحظة: اضبط وقت الحضن وفقاً لكمية RNA المضافة. - أنهِ التفاعل بإضافة 2 µL من 0.5 M EDTA (pH 8.0).
- قم بتحضير تفاعل إضافة ذيل poly(A) بحجم 50 µL وفقاً لـ الجدول 2. امزج مكونات التفاعل بلطف وحضّنها عند 37 °C لمدة 30–60 دقيقة.
- التنقية النهائية ومراقبة الجودة
- قم بتنقية mRNA ذو ذيل poly(A) باستخدام طقم تنقية RNA وفقاً لتعليمات الشركة المصنعة.
- استخلص mRNA المنقى في 20–30 µL من H₂O الخالي من النيوكلييز.
- قيّم جودة mRNA قبل الانتقال إلى عملية التعدي (transfection)
- قس تركيز mRNA عند 260 nm وحدد النقاء باستخدام نسب A260/A280 و A260/A230. استخدم تحضيرات mRNA التي تبلغ قيم A260/A280 فيها حوالي 2.0 وقيم A260/A230 أكبر من 2.0.
- قيّم سلامة mRNA باستخدام الرحلان الكهربائي للهلام أو نظام تحليل RNA وفقاً لتعليمات الشركة المصنعة.
- أكد طول ذيل poly(A) عن طريق RT-PCR أو تحليل Bioanalyzer. تحقق من أن طول ذيل poly(A) يتراوح بين 120 و 200 نيوكليوتيد.
- قسم mRNA المنقى إلى حصص (aliquots) وخزّن هذه الحصص عند −80 °C لتقليل دورات التجميد والإذابة.
2. ترنسفكشن عكسي
- اليوم -1: التحضير ما قبل عفن الخلية (Transfection)
- التحقق من النمط الظاهري للهرم
- إجراء صبغ β-galactosidase المرتبط بالهرم (SA-β-gal) على عينة خلوية ممثلة. والتحقق من أن أكثر من 70% من الخلايا إيجابية.
- تأكيد تعبير مؤشرات الهرم (p16 وp21) عن طريق qRT-PCR أو التألق المناعي.
- تحديد حيوية الخلايا والتحقق من أن الحيوية تتجاوز 90%.
- تحضير الكواشف
- تدفئة وسط الزرع الكامل مسبقاً إلى 37 °C.
- تدفئة المحلول الملحي المنظم بالفوسفات (PBS) مسبقاً إلى 37 °C.
- تحضير وسط Opti-MEM I طازج.
ملاحظة: لا تضف مثبط RNase إلى Opti-MEM I قبل الاستخدام.
- التحقق من النمط الظاهري للهرم
- اليوم 0: يوم عفن الخلية (Transfection)
ملاحظة: اترك حوالي 3 h من تحضير الكواشف حتى حضانة الخلايا التي تم عفنها.- تحضير mRNA الخاص بـ hTERT
- إذابة hTERT mRNA على الثلج. قياس تركيز mRNA واستخدام تحضيرات بتركيزات تتراوح بين 0.5 و1.0 µg/µL.
- تخفيف الكمية المطلوبة من hTERT mRNA في Opti-MEM I وفقاً لصيغة الزرع المستخدمة (الجدول 3). إضافة مثبط RNase ليصل التركيز النهائي إلى 0.5–1.0 U/µL والخلط بلطف.
- الحفاظ على mRNA المخفف على الثلج حتى تكوين المعقد.
ملاحظة: أضف مثبط RNase مباشرة قبل الاستخدام. لا تخزن mRNA مع مثبط RNase، لأن نشاطه ينخفض بعد التجميد.
- تحضير كاشف عفن الخلية (Transfection reagent)
- دمج 6.0 µL من كاشف عفن الخلية مع 100 µL من Opti-MEM I في أنبوب معقم وخالٍ من RNase. الخلط بلطف عن طريق السحب والضخ بالممصّة.
- حضانة الخليط في درجة حرارة الغرفة لمدة 5 min.
ملاحظة: بالنسبة لبنى hTERT mRNA الكبيرة (~5 kb)، يتم تحسين نسب الكاشف إلى mRNA لتكون بين 0.4 و0.6 µL من الكاشف لكل 100 ng من mRNA.
- تكوين معقد mRNA-Lipid
- إضافة محلول hTERT mRNA المخفف (100 µL) إلى محلول كاشف عفن الخلية المخفف (106 µL). الخلط بلطف عن طريق السحب والضخ بالممصّة 5–6 مرات.
- حضانة الخليط في درجة حرارة الغرفة لمدة 15–20 min.
- يجب ألا تتجاوز مدة تكوين المعقد 30 min.
- التحقق من نجاح تكوين المعقد من خلال ظهور محلول عكر قليلاً.
ملاحظة: قم بتحضير الخلايا خلال فترة تكوين المعقد.
- تحضير الخلايا لعفن الخلية العكسي (Reverse transfection)
- سحب وسط الزرع من مزارع الخلايا الهرمة.
- غسل الخلايا مرة واحدة بـ PBS المدفأ مسبقاً (2 mL لكل بئر في طبق ذو 6 آبار).
- إضافة 500 µL من trypsin-EDTA بتركيز 0.05% لكل بئر.
- حضانة الخلايا عند 37 °C لمدة 3–5 min.
- معادلة الـ trypsin باستخدام 3 mL من الوسط الكامل المحتوي على المصل.
- تفتيت الخلايا بلطف للحصول على معلق من الخلايا المفردة.
- تحديد عدد الخلايا باستخدام مقياس كرات الدم (hemocytometer) أو عداد خلايا آلي.
- تحضير معلق يحتوي على 2.0–2.5 × 10⁵ خلية لكل بئر في وسط كامل.
ملاحظة: تجنب عملية الـ trypsinization المطولة لأن الخلايا الهرمة حساسة جداً للإجهاد الميكانيكي. حافظ على الخلايا في حالة معلق؛ ولا تقم بذرعها مسبقاً قبل عفن الخلية العكسي.
- عفن الخلية العكسي (Reverse transfection)
- تحضير طبق الزرع
- إضافة 500 µL من poly-L-lysine بتركيز 0.01% إلى كل بئر من طبق ذو 6 آبار والحضانة لمدة 30 min في درجة حرارة الغرفة.
- سحب محلول الطلاء مباشرة قبل الاستخدام.
- إضافة 200 µL من معقد hTERT mRNA-lipid إلى مركز كل بئر.
- حضانة الطبق عند 37 °C و5% CO₂ لمدة 30 min.
ملاحظة: قم بطلاء الطبق بالتوازي مع تكوين المعقد وتحضير الخلايا.
- تحضير معلق الخلايا
- تعليق 2.0–2.5 × 10⁵ خلية في 1800 µL من وسط كامل خالٍ من المضادات الحيوية.
- إعادة تعليق الخلايا بلطف للحصول على معلق موحد من الخلايا المفردة.
ملاحظة: استخدم وسطاً خالياً من المضادات الحيوية أثناء عملية عفن الخلية.
- بذر الخلايا فوق المعقدات
- إضافة 1800 µL من معلق الخلايا مباشرة فوق معقدات hTERT mRNA-lipid المكونة مسبقاً.
- إمالة الطبق بلطف 2–3 مرات في كل اتجاه لتوزيع الخلايا بالتساوي.
ملاحظة: لا تستخدم الممصّة مع المعلق بعد إضافة الخلايا، لأن ذلك قد يؤدي إلى تفكيك معقدات mRNA-lipid.
- حضانة الخلايا
- حضانة الخلايا عند 37 °C في حاضنة رطبة تحتوي على 5% CO₂ لمدة 6–8 h.
- مراقبة التصاق الخلايا بواسطة المجهر الضوئي بعد 2–3 h من عفن الخلية.
- التحقق من أن الخلايا موزعة بالتساوي وبدأت في الالتصاق بسطح الزرع.
ملاحظة: قد يشير العدد المفرط من الخلايا العائمة أو الحطام الخلوي إلى سمية خلوية مرتبطة بعملية عفن الخلية.
- تحضير طبق الزرع
- تحضير mRNA الخاص بـ hTERT
3. التخفيف من السُمية الخلوية
- قلل فترة التعرض لعملية عفن الخلية (transfection) إلى 48 h إذا تجاوز فقدان الخلايا 20%.
- أضف 10 µM من مثبط ROCK Y-27632 إلى المزارع خلال فترة عفن الخلية لتحسين بقاء الخلايا على قيد الحياة.
- بعد 6–8 h من عفن الخلية، اشفط وسط عفن الخلية بعناية مع تقليل إزعاج الخلايا الملتصقة جزئياً. اترك حوالي 100 µL من الوسط المتبقي في كل بئر.
- أضف 1 mL من وسط نمو كامل طازج ومسخن مسبقاً ومدعم بـ 15% FBS إلى كل بئر.
- أضف الكلوروكين (chloroquine) بتركيز نهائي يتراوح بين 10–20 µM فور استبدال الوسط.
- حضن المزارع لمدة ساعتين إضافيتين عند 37 °C في حضانة رطبة تحتوي على 5% CO₂.
- استبدل الوسط المحتوي على الكلوروكين بوسط نمو كامل طازج.
- أعد المزارع إلى الحضانة لمواصلة النمو.
ملاحظة: راقب شكل الخلايا وحيويتها طوال فترة التعافي. قد يشير انفصال الخلايا المفرط أو وجود الحطام الخلوي إلى سمية خلوية مرتبطة بعملية عفن الخلية.
4. تحليل ما بعد عفن التحول
- قيّم تعبير بروتين TERT بعد 24–48 ساعة من عملية عفن الخلية (transfection).
- قس مستويات بروتين TERT عن طريق لطخة ويسترن (western blotting) أو تلوين التألق المناعي وفقاً للإجراءات المختبرية القياسية.
- قس نشاط التيلوميراز خلال الفترة الزمنية نفسها باستخدام مقايسة مناسبة لنشاط التيلوميراز.
ملاحظة: ينخفض نشاط التيلوميراز عادةً بعد 48 ساعة بسبب تحلل mRNA الخاص بـ hTERT الذي تم إدخاله بشكل عابر. - قيّم طول التيلومير بعد 48–72 ساعة من عملية عفن الخلية باستخدام تفاعل البوليميراز المتسلسل الكمي المتعدد أحادي اللون (MMqPCR) أو طريقة مكافئة لتحليل طول التيلومير.
ملاحظة: يمكن ملاحظة استطالة ملموسة في التيلومير بعد الإيصال الناجح لـ mRNA الخاص بـ hTERT. - قيّم المظاهر المظهرية المرتبطة بالشيخوخة وتلك المرتبطة بتجدد الشباب بعد 7 أيام من عملية عفن الخلية
- قس نشاط β-galactosidase المرتبط بالشيخوخة (SA-β-gal).
- قس مستويات تعبير p16 وp21.
- قيّم تعبير Ki67.
- افحص المورفولوجيا الخلوية باستخدام المجهر الضوئي.
ملاحظة: قارن المزارع المعالجة مع ضوابط هرمة غير معالجة أو خضعت لعفن خلية وهمي (mock-transfected) لتقييم التغيرات في المظاهر المظهرية المرتبطة بالشيخوخة والخصائص التكاثرية.
5. بروتوكول الجرعات المتكررة (اختياري)
- قم بإجراء عملية ترنسفكشن الأولية كما هو موضح في الأقسام 2-4.
- كرر عمليات الترنسفكشن وفقاً للجدول الزمني التالي: اليوم 0: الترنسفكشن الأول؛ اليوم 5: الترنسفكشن الثاني؛ اليوم 10-12: الترنسفكشن الثالث.
- حافظ على الخلايا كمزارع ملتصقة ولا تستخدم التريبسين قبل عمليات الترنسفكشن اللاحقة.
- حضّر معقدات hTERT mRNA–lipid جديدة كما هو موضح في الأقسام 2.2.1-2.2.3.
- اشفط وسط المزرعة من كل بئر.
- أضف 200 µL من معقدات hTERT mRNA–lipid مباشرة إلى كل بئر.
- أضف 800 µL من وسط F-10 الكامل الطازج فور إضافة المعقدات.
- حضّن الخلايا لمدة 4-6 h عند 37 °C في حضانة رطبة تحتوي على 5% CO₂.
- استبدل وسط الترنسفكشن بوسط كامل طازج.
ملاحظة: اقتصر العلاج على ثلاث دورات ترنسفكشن كحد أقصى لتقليل السمية الخلوية التراكمية المرتبطة بالترنسفكشن.
6. بروتوكول عفن التعدي الأمامي (2 µg/mL، تنسيق 6 آبار)
- اليوم −1: استزراع الخلايا
- فصل الخلايا الليفية الهرمة أو التي في بداية طور الهرم باستخدام 0.05% trypsin-EDTA.
- تعادل تأثير الـ trypsin باستخدام وسط استزراع كامل.
- تحديد عدد الخلايا ومدى حيويتها.
- استزراع الخلايا في أطباق ذات 6 آبار بكثافة 2.0–2.5 × 10⁵ خلية لكل بئر.
- تحضين الخلايا طوال الليل عند 37 °C في حاضنة رطبة تحتوي على 5% CO₂ حتى تصل نسبة التلاقي إلى 60–80% تقريبًا.
- اليوم 0: تحضير معقدات hTERT mRNA والكاشف
- إذابة جزء من hTERT mRNA المعدل بالنوكليوزيد على الثلج.
- تخفيف hTERT mRNA في Opti-MEM ليصل إلى تركيز نهائي قدره 2 µg/mL في أنبوب معقم خالٍ من RNase (الأنبوب A).
- إضافة مثبط RNase إلى الأنبوب A بتركيز نهائي يتراوح بين 0.5–1.0 U/µL والخلط برفق.
- تخفيف كاشف عفن الخلايا (transfection reagent) في Opti-MEM في أنبوب ثانٍ خالٍ من RNase (الأنبوب B) باستخدام 0.4–0.6 µL من الكاشف لكل 100 ng من mRNA.
- إضافة محتويات الأنبوب B قطرة بقطرة إلى الأنبوب A مع الخلط برفق.
- تحضين الخليط في درجة حرارة الغرفة لمدة 15–20 دقيقة.
- اليوم 0: عملية عفن الخلايا الأمامي (Forward transfection)
- التأكد من أن نسبة تلاقي الخلايا تتراوح بين 60–80% وأنها تظهر شكلاً مورفولوجياً سليماً.
- سحب وسط الاستزراع.
- غسل الخلايا مرة واحدة باستخدام 1–2 mL من PBS المُدفأ مسبقاً.
- إضافة 0.5 mL من وسط كامل أو وسط منخفض المصل المُدفأ مسبقاً إلى كل بئر.
- إمكانية إضافة chloroquine بتركيز نهائي يتراوح بين 10–20 µM.
- إضافة 0.5 mL من معقدات hTERT mRNA والكاشف التي تم تحضيرها في الخطوة 6.2.6 إلى كل بئر.
- هز الطبق برفق لتوزيع المعقدات بشكل متساوٍ.
- تحضين الخلايا لمدة 4–6 ساعات عند 37 °C في حاضنة رطبة تحتوي على 5% CO₂.
ملاحظة: تمديد فترة التحضين إلى 6–8 ساعات للخلايا الهرمة إذا لزم الأمر. - سحب وسط عملية العفن.
- إضافة 2.0 mL من وسط كامل طازج إلى كل بئر.
- إجراء تحليلات ما بعد عملية العفن كما هو موضح في القسم 4.
ملاحظة: استخدم نفس دفعة hTERT mRNA، ونفس كاشف عفن الخلايا، والجرعة الاسمية عند مقارنة ظروف عفن الخلايا الأمامي والعكسي.
النتائج
تم هندسة modRNA d2EGFP-T2A-hTERT كإطار قراءة مفتوح هجين، حيث تم ربط مراسل EGFP غير مستقر (d2EGFP) بـ TERT البشري عبر ببتيد T2A ذاتي الانشطار. تتوفر التسلسلات النكليوتيدية والبروتينية الكاملة لجميع البنى في الملف التكميلي 1. وقد أُحيط التسلسل المشفّر بمنطقة غير مترجمة (UTR) اصطناعية عند الطرف '5 ومنطقة 3′ UTR لـ β-globin البشري لتعزيز كفاءة الترجمة واستقرار mRNA (الشكل 1A). كما احتوت كاسيت التعبير على تسلسل اصطناعي لمثبت الإنزيم (Es) وتسلسل اصطناعي ومعزز للنسخ (TEs) صُمما لتحسين إنتاجية بوليميراز T7 وتقليل الإنهاء المبكر لعملية النسخ. وبعد الاستنساخ في اتجاه المصب لمروج T7، أُجري النسخ in vitro باستخدام نظير القبعة المضاد للعكس (ARCA) ونكليوتيدات معدلة (m5CTP و ΨUTP)، متبوعاً بإضافة ذيل poly(A) إنزيمياً (حوالي 120–200 nt) لتوليد modRNA d2EGFP-T2A-hTERT ذو سلامة عالية، ومُتوج ومُذيل بالبولي أدينيلات (الشكل 1A).
أكد التحليل الكهربائي المؤتمت للحمض النووي الريبوزي (RNA) كفاءة تخليق النسخة، حيث كشف عن وجود نوع سائد من RNA بالحجم المتوقع مع الحد الأدنى من نواتج التحلل عبر كميات إدخال متعددة، وهو ما يتوافق مع التوليد الناجح لـ modRNA كامل الطول (الشكل 1B). وبعد نقل 2 µg/mL من d2EGFP-T2A-hTERT modRNA إلى خلايا LF1 الليفية في مرحلة الشيخوخة المبكرة، أصبح بروتين hTERT قابلاً للكشف خلال 24 h وظل مرتفعاً لمدة 48–96 h، مما يشير إلى ترجمة مستمرة للنسخة الاصطناعية (الشكل 1C). وأظهر تحليل المراسل d2EGFP المرتبط تألقاً قوياً بعد عملية النقل العكسي، بينما لوحظ تألق أقل بكثير بعد عملية النقل الأمامي (الشكل 1D,E). وتشير هذه النتائج إلى تعزيز توصيل وتعبير hTERT modRNA باستخدام نهج النقل العكسي في خلايا LF1 الليفية في مرحلة الشيخوخة المبكرة.
أدى التعدي الأمامي (FT) المتكرر لخلايا LF1 الليفية في مرحلة الشيخوخة المبكرة باستخدام modRNA من نوع d2EGFP-T2A-hTERT بفواصل زمنية مدتها 5 أيام إلى زيادة تدريجية في متوسط طول التيلومير (rT/S) مقارنة بمجموعات الضبط التي خضعت لتعدٍ وهمي، وذلك وفقاً لقياسات تفاعل البوليميراز المتسلسل الكمي المتعدد أحادي اللون (MMqPCR) (الشكل 2A). وقد ارتفعت نسبة rT/S بعد كل دورة تعدٍ أمامي، مع تحسن في الدلالة الإحصائية من *P < 0.05 إلى **P < 0.01.
أدى تطبيق نفس جدول الجرعات باستخدام عفن التعديل العكسي (RT) إلى زيادة أكثر وضوحاً في طول التيلومير. وقد ارتفعت نسبة rT/S بعد كل دورة من دورات RT ووصلت إلى فروق ذات دلالة إحصائية عالية مقارنة بالمجموعات الضابطة التي خضعت لعملية تعديل وهمية (*P < 0.05 إلى ****P < 0.0001) (الشكل 2B). وأظهرت المقارنة المباشرة بين FT وRT بعد ثلاث دورات علاجية أن كلا النهجين قد زادا من قيم rT/S بشكل ملحوظ مقارنة بالمجموعات الضابطة التي خضعت لعملية تعديل وهمية؛ ومع ذلك، حقق RT زيادة أكبر من FT في ظل ظروف الجرعات والتوقيت ذاتها (*P < 0.05، ***P < 0.001، ****P < 0.0001) (الشكل 2C).
وأظهر تحليل النمو طويل الأمد أن التوصيل المتكرر لـ hTERT modRNA أدى إلى تمديد العمر التكراري (الشكل 2D). حيث أظهرت الخلايا التي تلقت دورة علاجية واحدة، أو دورتين، أو ثلاث دورات، تضاعفات سكانية تراكمية أكبر بشكل تدريجي مقارنة بمجموعات التحكم التي خضعت لعملية ترانسفكشن وهمية. وأظهرت المزارع التي تلقت ثلاث جولات من علاج hTERT modRNA، خاصة عن طريق RT، أكبر تباعد عن منحنيات نمو مجموعة التحكم على مدار 250 يومًا تقريبًا (حتى ****P < 0.0001). وتظهر حسابات تضاعف السكان في الملف التكميلي 2.
أظهرت أرومات ليفية من سلالة LF1 في مرحلة الشيخوخة المبكرة، والتي تم ترانسفكشنها بـ d2EGFP-T2A-hTERT modRNA، نمط سُلّم TRAP قويًا بعد 48 ساعة من الترانسفكشن، بينما أظهرت الخلايا المعالجة بـ mock و eGFP-modRNA إشارة خلفية فقط، مما يشير إلى أن نشاط التيلوميراز ناتج عن التعبير الخارجي لـ hTERT (الشكل 3A). وقد أدى المعالجة المسبقة بالحرارة إلى إلغاء نمط السلّم، مما يؤكد خصوصية الاختبار (الشكل 3B).
أظهر تحليل المجرى الزمني أن نشاط التيلوميراز قد بلغ ذروته بين 24 و48 ساعة بعد عملية عفن الخلية (transfection)، ثم انخفض لاحقاً ليعود إلى مستويات قريبة من خط الأساس بحلول 72–96 ساعة (الشكل 3C). وأدى زيادة تركيز hTERT modRNA من 50 إلى 3,000 ng/mL إلى زيادة مقابلة في شدة إشارة TRAP، مما يثبت تنشيط التيلوميراز المعتمد على الجرعة (الشكل 3D).
أظهر التحليل الوظيفي باستخدام بنى hTERT من النوع البري (wild-type)، والنوع غير النشط تحفيزياً (CI)، والنوع الذي يفتقر إلى إشارة التمركز النووي (ΔNLS)، أن hTERT من النوع البري فقط هو الذي ولد نشاطاً قوياً للتيلوميراز. وفشل كل من المتغيرين CI وΔNLS في تحفيز نشاط مماثل على الرغم من تماثل ظروف التوصيل (الشكل 3E). وتماشياً مع هذه النتائج، كشف تحليل MMqPCR عن زيادة ملحوظة في متوسط طول التيلومير (rT/S ≈ 1.4) فقط في الخلايا التي تلقت modRNA الخاص بـ hTERT من النوع البري. بينما ظلت الخلايا التي تلقت CI-hTERT أو ΔNLS-hTERT أو العلاج الوهمي (mock treatment) عند مستويات قريبة من الخط الأساسي (rT/S ≈ 0.3؛ ****P < 0.0001) (الشكل 3F).
أدت ثلاث جولات متتالية من عفك التعديل العكسي باستخدام hTERT modRNA بفاصل زمني قدره 5 أيام إلى تقليل نسبة الخلايا الموجبة لإنزيم β-galactosidase المرتبط بالشيخوخة بشكل ملحوظ. حيث انخفضت نسبة الخلايا الموجبة من حوالي 85% في المزارع التي خضعت للمعالجة الصورية إلى حوالي 40% في المزارع المعالجة بـ hTERT بعد 15 يوماً من عملية العفك النهائية (***P < 0.001) (الشكل 4A).
كشف الصبغ المناعي البؤري عن زيادة في تعبير Ki67 في الخلايا التي تلقت ثلاث جولات من عفن transfection العكسي لـ hTERT مقارنة بمجموعات الضبط التي عولجت وهمياً، مما يشير إلى زيادة النشاط التكاثري (الشكل 4B). كما أظهر تحليل RT-qPCR انخفاضاً في تعبير علامات الشيخوخة p16 وp21 بعد المعالجة بـ hTERT. ومقارنة بالخلايا في مرحلة الشيخوخة المبكرة المعالجة وهمياً، انخفض تعبير p16 من حوالي 2.3 ضعف إلى 0.7 ضعف، وانخفض تعبير p21 من حوالي 11 ضعفاً إلى 6 أضعاف (**P < 0.01; ****P < 0.0001) (الشكل 4C,D). ويوضح الشكل التكميلي 1 كذلك أن المعالجة بـ chloroquine (CQ) أو Y-27632 بمفردهما لم تؤدِ إلى تغيير ملحوظ في تعبير p16 أو p21 في الخلايا التي خضعت لـ transfection وهمي. وفي المقابل، أدى الجمع بين CQ وY-27632 خلال ثلاث جولات من transfection العكسي لـ hTERT إلى تحقيق أكبر انخفاض في تعبير كل من p16 وp21 مقارنة بـ transfection العكسي لـ hTERT بمفرده أو باستخدام أي من العاملين بشكل فردي، بينما أدت المعالجة بعامل واحد إلى تأثيرات متوسطة. وتشير هذه النتائج إلى أن الاستخدام المشترك لـ CQ وY-27632 قد عزز خفض تعبير علامات الشيخوخة بعد transfection العكسي لـ hTERT mRNA. ومجتمعة، تثبت هذه النتائج أن تكرار transfection العكسي لـ hTERT mRNA يحفز استطالة التيلومير، ويقلل من علامات الشيخوخة، ويعزز الخصائص التكاثرية في خلايا LF1 الليفية في مرحلة الشيخوخة المبكرة.
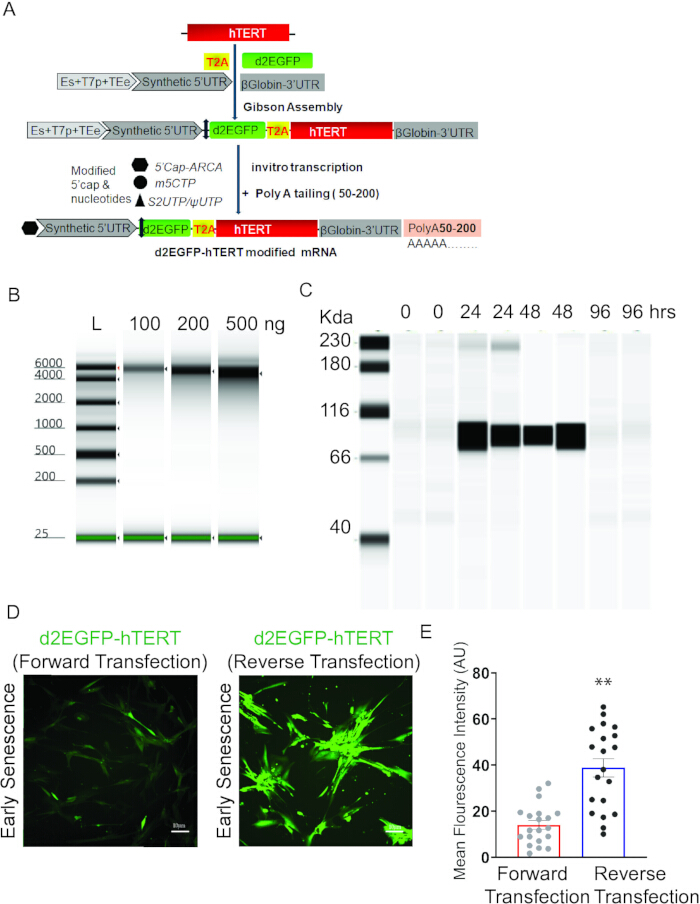
الشكل 1: تصميم وتخليق والتحقق الوظيفي من d2EGFP‑T2A‑ hTERT mRNA في الخلايا الليفية LF1 في مرحلة الشيخوخة المبكرة. (A) مخطط تصميم بنية hTERT mRNA الهجينة التي تحتوي على كاسيت d2EGFP المرتبط بـ T2A peptide للتعبير المتزامن عن hTERT و EGFP غير المستقر. يحيط بـ d2EGFP-T2A-hTERT ORF كل من 3’ UTR لجين β globin البشري (HBB) و 5’ UTR الاصطناعي. تم تخليق mRNA باستخدام نيوكليوتيدات معدلة، وأُضيف في النهاية ذيل poly (A). (B) التخليق الفعال لـ d2EGFP-T2A-hTERT mRNA عالي السلامة باستخدام النسخ in vitro كما تم تحليله بواسطة تحليل RNA الكهربائي المؤتمت. (C) تحليل المسار الزمني للتعبير عن بروتين hTERT باستخدام مقايسة مناعية مؤتمتة قائمة على الشعيرات بعد ترانسفكشن 2 µg/mL من d2EGFP-T2A-hTERT mRNA. (D) تم فحص فعالية وتعبير ترانسفكشن d2EGFP-T2A-hTERT mRNA، كما تم تقييمه من خلال تعبير EGFP بين الترانسفكشن الأمامي (FT) والترانسفكشن العكسي (RT)، في الخلايا الليفية ثنائية الصيغة الصبغية الأولية في مرحلة الشيخوخة المبكرة (LF1). شريط المقياس = 10 µm. (E) تكميم متوسط شدة الفلورية (MFI) لإشارة eGFP بعد الترانسفكشن الأمامي أو العكسي. تم تحليل ما مجموعه 20 صورة فردية لكل حالة، تشمل 4 مناطق متميزة من 5 مكررات بيولوجية. تمثل البيانات المتوسطات ± SD. **P < 0.01؛ كما تم تقييمه بواسطة اختبار t غير المقترن مع تصحيح Welch. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
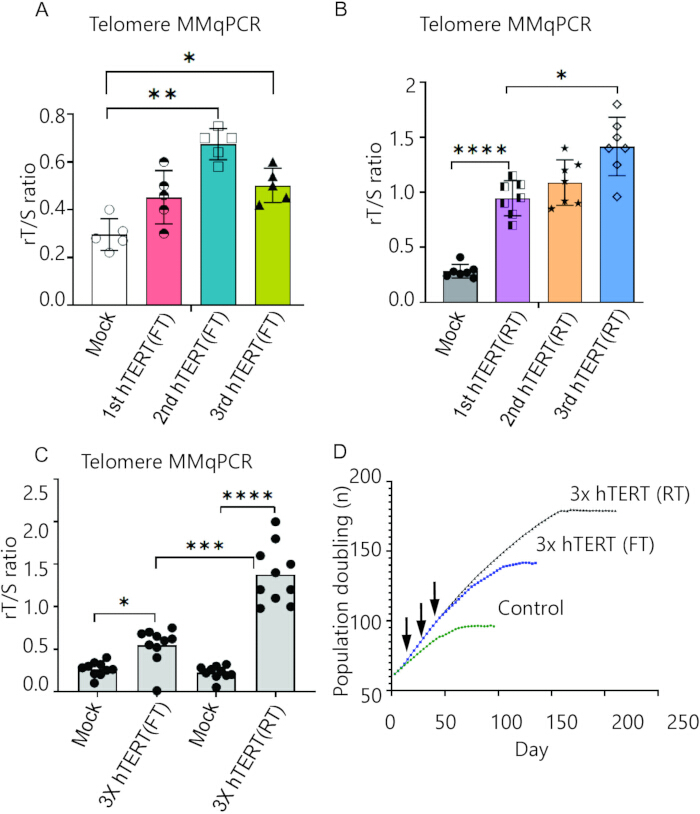
الشكل 2: ديناميكيات طول التيلومير وعمر التكاثر بعد عمليات ترانسفكشن متكررة لـ hTERT mRNA في الاتجاه الأمامي مقابل العكسي في الخلايا الليفية LF1 في مرحلة الشيخوخة المبكرة. (A) تم تحديد متوسط أطوال التيلومير (rT/S) باستخدام Telomere MMqPCR. خضعت الخلايا الليفية في مرحلة الشيخوخة المبكرة لترانسفكشن أمامي (FT) باستخدام d2EGFP-T2A-hTERT mRNA ثلاث مرات متتالية بفواصل زمنية مدتها 5 أيام بدءاً من مضاعفة الجمهرة (PD) رقم 76. يشير شريط الخطأ إلى SEM؛ n = 5 مكررات بيولوجية؛ *P < 0.05، **P < 0.01 مقارنة بالخلايا المعالجة بـ mock فقط. (B) على غرار (A)، تم تقييم rT/S عندما خضعت الخلايا في مرحلة الشيخوخة المبكرة لترانسفكشن متكرر (RT) باستخدام d2EGFP-T2A-hTERT mRNA ثلاث مرات متتالية بفواصل زمنية مدتها 5 أيام بدءاً من مضاعفة الجمهرة (PD) رقم 76. يمثل شريط الخطأ SEM؛ n = 7 مكررات بيولوجية؛ *P < 0.05، ****P < 0.0001 مقارنة بالخلايا المعالجة بـ mock حصراً. (C) مقارنة متوسط طول التيلومير (rT/S) بعد 3 عمليات ترانسفكشن أمامية وعكسية متتالية بفواصل زمنية مدتها 5 أيام، أو mock فقط. يمثل شريط الخطأ SEM؛ n = 10 مكررات بيولوجية؛ *P < 0.05، ***P < 0.001، ****P < 0.0001. (D) منحنيات نمو الخلايا الليفية LF1 التي خضعت لترانسفكشن بـ 2 µg/ml من d2EGFP-T2A-hTERT mRNA أو mock فقط، مرة واحدة، أو مرتين، أو ثلاث مرات متتالية بفواصل زمنية مدتها 5 أيام بدءاً من PD# 76. تشير الأسهم السوداء إلى توقيتات المعالجة. تم تكرار منحنيات النمو ثلاث مرات، مع زراعة كل جمهرة في ثلاث نسخ مكررة. 3 مكررات تقنية لكل عينة بيولوجية، وتمثل البيانات المتوسطات ± SD. *P < 0.05، **P < 0.01؛ ****P < 0.0001، وفقاً لتقييم اختبار Brown-Forsythe و Welch’s ANOVA يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
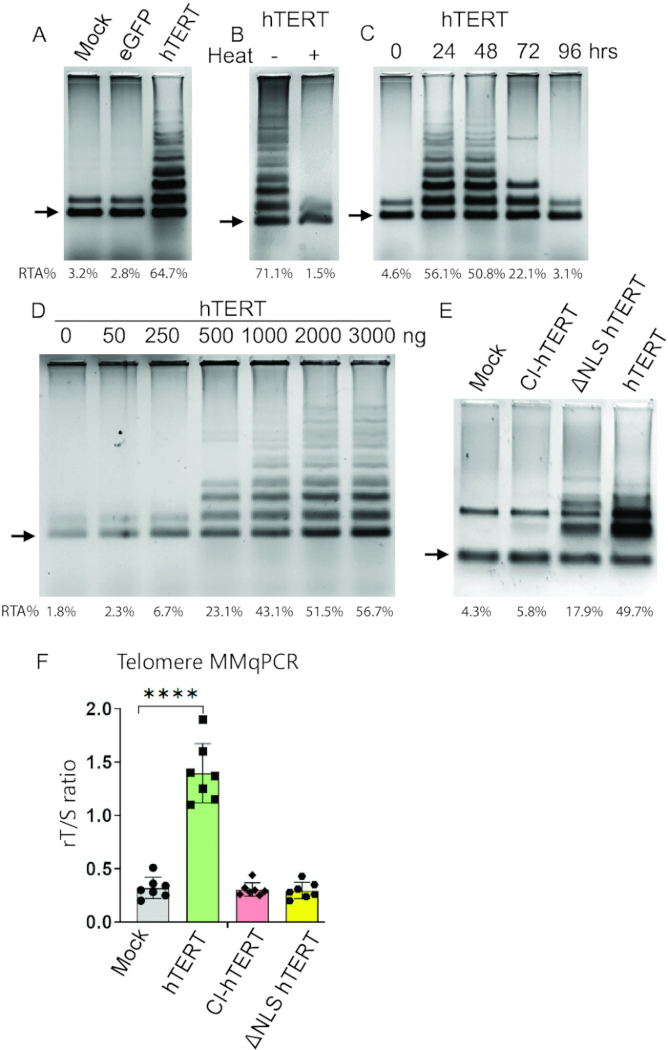
الشكل 3: يؤدي mRNA الخاص بـ hTERT النشط تحفيزياً والمتموضع في النواة إلى زيادة عابرة ومعتمدة على الجرعة في نشاط التيلوميراز، وهو أمر كافٍ وحده لتعزيز استطالة ملموسة في التيلوميرات في خلايا LF1 الليفية في مرحلة الشيخوخة المبكرة. (A) تم تر transfection لخلايا الشيخوخة المبكرة باستخدام mock، أو eGFP، أو d2EGFP-T2A-hTERT mRNA. بعد 48 h من الـ transfection، تم تحضير مستخلص خلوي من 20,000 خلية وإخضاعه لمقايسة TRAP. تم تشغيل نواتج التفاعل على PAGE طبيعي وصبغها بـ SYBR Green. (B) تثبيط نشاط التيلوميراز بوساطة الحرارة كما تم قياسه باستخدام مقايسة TRAP. (C) أظهر تحليل نشاط التيلوميراز بمرور الوقت في خلايا LF1 في مرحلة الشيخوخة المبكرة بعد الـ transfection بـ hTERT mRNA أن النشاط عاد إلى المستوى الأساسي في غضون 72 h، مما يشير إلى تنشيط إنزيمي عابر. (D) تلقت خلايا LF1 في مرحلة الشيخوخة المبكرة كميات متفاوتة من d2EGFP-T2A-hTERT mRNA (0–3,000 ng/mL)، مما أظهر زيادة في نشاط التيلوميراز تتناسب مع الجرعة. (E) أدى إيصال 2 µg/ml من TERT إلى زيادة نشاط التيلوميراز في خلايا LF1 في مرحلة الشيخوخة المبكرة. أدى ΔNLS إلى زيادة جزئية في نشاط التيلوميراز دون إحداث استطالة في التيلومير، لأنه يعمل في السيتوبلازم ولكن لا ينتقل إلى النواة، بينما لم يؤدِ CI TERT mRNA إلى هذا التأثير، مما يشير إلى نتائج وظيفية متميزة. (F) تأثير الـ reverse transfection لـ TERT الوظيفي، وTERT المفتقر لإشارة التموضع النووي (ΔNLS)، وTERT غير النشط تحفيزياً (CI) على متوسط أطوال التيلوميرات (rT/S) في خلايا LF1 في مرحلة الشيخوخة المبكرة، مما يشير إلى أهمية TERT النشط تحفيزياً والمتموضع في النواة في استطالة التيلومير. يمثل شريط الخطأ SD؛ n = 7 مكررات بيولوجية؛ ****P < 0.0001 مقارنة بالخلايا المعالجة بـ mocks فقط، كما تم تقييمه بواسطة one-way ANOVA مع تصحيح Welch. تم تدوين RTA%-نشاط التيلوميراز النسبي (نسبة مئوية من الضابط) في أسفل كل مسار. تم حساب نسبة مستويات كثافة سلالم عينات TRAP ونطاق ITAS (الضابط الداخلي- IC) باستخدام الصيغة التالية لكل مسار: Activity normalized = Ladder intensity/ IC intensity وتمت معايرة كل عينة بالنسبة للضابط الموجب كنسبة مئوية (الضابط الموجب؛ H1299 2,500 cells) باستخدام الصيغة التالية: Relative activity (%) =Activity normalized (sample)/ Activity normalized (reference). تم تطبيق طرح الخلفية في كل خطوة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
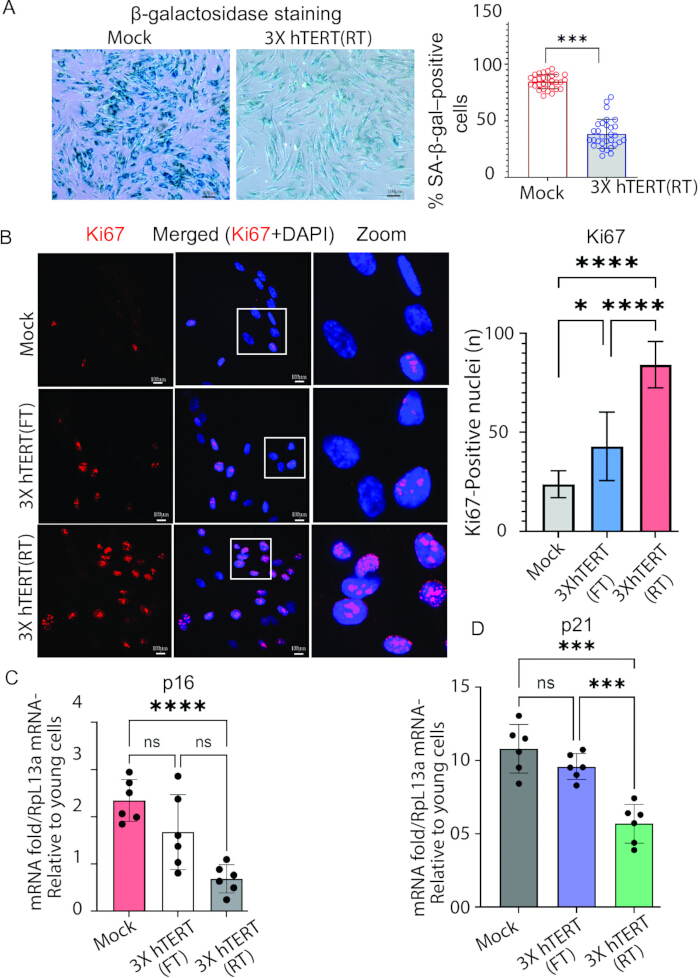
الشكل 4يؤدي النقل العكسي المُحسَّن للحمض الريبي النووي المرسال hTERT إلى عكس جزئي للأنماط الظاهرية المرتبطة بالشيخوخة واستعادة مؤشرات التكاثر في الخلايا الليفية LF1 في مراحل الشيخوخة المبكرة. (Aصور ممثلة لخلايا LF1 في مرحلة الشيخوخة المبكرة التي تعبر عن β-gal، وذلك بعد عملية ترانسفكشن لـ mRNA الخاص بـ hTERT المعدل ثلاث مرات متتالية بفواصل زمنية تبلغ 5 أيام. شريط المقياس = 100 µmتَمّ تحليل تعبير β-gal بعد 15 يوماً من آخر عملية ترنسفكشن (نقل جينات). أُجريت التجارب ثلاث مرات باستخدام >تم تقييم 100 خلية لكل عينة يدويًا.B) صور مجهرية بؤرية ممثلة (تكبير 20x) لخلايا LF1 في مراحل الشيخوخة المبكرة، مصبوغة بعلامة التكاثر Ki67. شريط المقياس = 100 µmزيادة ملحوظة في تعبير Ki-67 بعد 3 جولات من ترانسفكشن عكسي باستخدام hTERT. تزداد نسبة النوى الموجبة لـ Ki67 بشكل ملحوظ بعد 3× hTERT (RT). يمثل الرسم البياني المتوسط ± الانحراف المعياري لعدد النوى الموجبة لـ Ki67، مع تسويتها وفقاً لحالة الترانسفكشن الوهمي (Mock-transfected). تم فحص ما مجموعه 18 صورة لكل حالة، حيث اختيرت 6 حقول متميزة من كل مكرر بيولوجي، بإجمالي n = 3 مكررات بيولوجية. ****P < 0.0001. (سيتعبير مؤشرات الشيخوخة بعد تجديد جزئي ثلاث مرات بوساطة hTERT كما تم تقييمه بواسطة RT-qPCR (العدد = 6). تمثل جميع البيانات المتوسطات ± الانحراف المعياري. **P < 0.01; ****P < 0.0001، وفقاً لما تم تقييمه بواسطة اختبار t غير المزدوج مع تصحيح ويلش (Welch's correction). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| مكوّن | الحجم/التركيز النهائي |
| الحمض النووي للقالب لـ PCR | ٢٠٠ - ١٠٠٠ نانوجرام |
| محلول منظم للنسخ في المختبر بتركيز 10× (10× IVT Buffer) | 2 μL |
| أدينوسين ثلاثي الفوسفات (100 ملي مولار) | 2 μL (بتركيز نهائي 10 ميلي مولار) |
| جوانوسين ثلاثي الفوسفات (100 مللي مولار) | 1.5 μL (تركيز نهائي 7.5 ملي مولار) |
| سيتيدين ثلاثي الفوسفات (100 ملي مولار) | 2 μL (التركيز النهائي 10 ميليمولار) |
| m1Ψ-5′-TP (100 ملي مولار) | 2 μL (تركيز نهائي 10 ملي مولار) (يمكنك زيادة دمج الـ pseudo-UTP عن طريق دمج UTP العادي بنسبة تتراوح بين 1:4 و2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 ملي مولار) | 4 μL (التركيز النهائي 2 ملي مولار) |
| مثبط الريبونوكلياز (40 وحدة/μL) | 0.5 μL (20 وحدة) |
| T7 RNA Polymerase (50 وحدة/μL) | 2 μL (١٠٠ وحدة) |
| ماء خالٍ من النوكلياز H₂O | 20 μL |
الجدول 1: تكوين تفاعل النسخ في المختبر (IVT) لتخليق mRNA لـ hTERT المعدل بالنوكليوزيد. تدرج مكونات التفاعل والكميات النهائية المستخدمة في تخليق IVT المقترن بـ ARCA.
| المكون | الحجم/التركيز النهائي |
| mRNA منقى حتى 5 μg | ≤20 μL |
| 10× Poly(A) Tailing Buffer | 5 μL |
| ATP (10 mM | 5 μL (1 mM النهائي) (على الرغم من وجوده بالفعل في المنظم، إلا أن الإضافة الإضافية تساعد في استقرار poly A.) |
| Poly(A) Polymerase (5 U/μL) | 1 μL (5 U) |
| Nuclease-free H₂O | حتى يصل المجموع إلى 50 μL |
الجدول 2: تركيب تفاعل إضافة ذيل poly(A) المستخدم للتعديل ما بعد النسخي لـ hTERT mRNA. يتم عرض أحجام الكاشفات وظروف التفاعل لإنتاج ذيل poly(A) يتكون من 120-200 نيوكليوتيد.
| المعيار | تنسيق 12 بئراً | تنسيق 6 آبار |
| مساحة سطح النمو | ~3.8 cm² | ~9.5 cm² |
| كمية الوسط لكل بئر | 1.0 mL | 2.0 mL |
| عدد استزراع الخلايا | 5× 10⁴–6.5× 10⁴ Cells/ml | 2.0–2.5 × 10⁵ |
| متوسط عدد الخلايا (عند تلاقي بنسبة 100%) | 5.7× 10⁴–7.2× 10⁴ Cells/ml | 2.9–3 × 10⁵ |
| كمية ترنسفيكشن mRNA | 750 –1000ng | 2000–3500 ng |
| عامل ترنسفيكشن mRNA | 1.5 – 3.0 µL | 4.75 – 7 µL |
| الحجم النهائي لـ mRNA + عامل الترنسفيكشن في Opti-MEM | 50 µL | 200 µL |
الجدول 3: معاملات ترانسفكشن الموصى بها لإيصال mRNA الخاص بـ hTERT في تنسيقات زراعة ذات 6 و12 بئراً. ملخص لكثافات استزراع الخلايا، وكميات mRNA، وأحجام كاشف الترانسفكشن، وأحجام تكوين المعقدات المستخدمة في تجارب الترانسفكشن الأمامية والعكسية.
الشكل التكميلي 1: تأثير الكلوروكين وY-27632 على تعبير p16 وp21 المرتبط بالشيخوخة بعد عملية ترانسفكشن عكسي متكرر لـ hTERT mRNA. (A) تحليل RT-PCR الكمي لتعبير mRNA لـ p16 في أرومات ليفية من نوع LF1 خضعت لمعاملة وهمية (mock-treated) وأخرى خضعت لترانسفكشن عكسي (RT) لـ hTERT ثلاث مرات (3×)، وذلك بعد المعاملة بالكلوروكين (CQ)، أو Y-27632، أو مزيجهما، كما هو موضح. (B) تحليل RT-PCR الكمي لتعبير mRNA لـ p21 تحت نفس الظروف التجريبية. تمت معايرة مستويات النسخ بالنسبة لـ RpL13a وعُبر عنها بالنسبة إلى الخلايا الضابطة الشابة (PD#12). تمثل نقاط البيانات الفردية مكررات بيولوجية. تمثل البيانات المتوسطات ± الانحراف المعياري (SD) لـ n = 2 من المكررات البيولوجية، مع 5 مكررات تقنية لكل مكرر بيولوجي. تم توضيح الدلالة الإحصائية في الشكل؛ ns، غير دال إحصائياً. *P < 0.05، **P < 0.01، ****P < 0.0001، وفقاً لما تم تحديده بواسطة اختبار Brown–Forsythe وWelch's ANOVA. الاختصارات: CQ، كلوروكين؛ RT، ترانسفكشن عكسي؛ Y-27632، مثبط كيناز البروتين المرتبط بـ Rho (ROCK).يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 1: تتابعات DNA والبروتين لنماذج تعبير hTERT.يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 2: حساب تضاعف الخلايا (PD). تم حساب تضاعفات الخلايا (PD) باستخدام الصيغة PD = log₂ (Nf/N₀)، حيث تمثل N₀ عدد الخلايا التي تم استزراعها، وتمثل Nf عدد الخلايا الحيوية التي تم حصادها. وقد تم تحديد تضاعف الخلايا التراكمي من خلال جمع قيم PD عبر الممرات الخلوية.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تعيد هذه الدراسة صياغة الشيخوخة الخلوية باعتبارها مشكلة توصيل متميزة بدلاً من كونها مجرد تباين طفيف في الفسيولوجيا التكاثرية، وتطور استراتيجية لنقل mRNA الخاص بالتيلوميراز مصممة خصيصاً لتلائم القيود الفيزيائية الحيوية والمناعية للحالة الهرمة. تظهر الخلايا الهرمة أغشية صلبة وغنية بالكوليسترول مع انخفاض في نشاط الالتقام الخلوي، مما يخلق حاجزاً كبيراً أمام التوصيل الفعال للأحماض النووية. ومن خلال اعتماد نهج النقل العكسي، يستغل هذا البروتوكول فترة الالتصاق العابرة التي تخضع خلالها الخلايا الهرمة لإعادة تشكيل الغشاء وتظهر لديهما لدونة غشائية متزايدة، وبذلك يتم مزامنة تلامس المعقد الخلوي مع فترة تعزيز إمكانات الامتصاص3,4. وتظهر النتائج التمثيلية أن هذه الاستراتيجية تحسن من توصيل وتعبير modRNA لـ hTERT مقارنة بالنقل الأمامي التقليدي، مما يؤدي إلى استطالة أكبر في التيلوميرات وظهور أنماط ظاهرية مرتبطة بتجديد الشباب بشكل أكثر وضوحاً.
تتمثل السمة المركزية لهذه الطريقة في استراتيجية هندسة mRNA متعددة الطبقات مصممة لمعالجة ثلاثة عوائق رئيسية في الخلايا الهرمة: ارتفاع إشارات المناعة الفطرية، وزيادة تحلل RNA، وضعف القدرة الترجمية23,24,25. ويؤدي دمج pseudouridine و 5-methylcytidine إلى تقليل تنشيط مسارات إشارات TLR3 و TLR7/8 و RIG-I، مع تعزيز استقرار النسخ وكفاءة الترجمة في الوقت ذاته13,26. كما يعمل استخدام ARCA capping وتحسين ذيل poly(A) على تحسين استقرار النسخ والناتج الترجمي بشكل أكبر، مما يتيح تعبيراً قوياً ولكن مؤقتاً لـ hTERT. وتماشياً مع الدراسات السابقة، تدعم هذه التعديلات التعبير الفعال عن التيلوميراز مع تقليل تنشيط المناعة الفطرية المرتبط بتوصيل RNA خارجي المنشأ.
يتناول البروتوكول أيضاً البيئة خارج الخلوية الغنية بـ RNase والتي تميز المزارع الهرمة27. ويتم تعزيز حماية RNA من خلال تعديل النوكليوزيد، وتكوين مركبات ليبيدية، والإضافة الفورية لمثبط RNase قبل عملية عفن الخلايا (transfection). بالإضافة إلى ذلك، تم تعديل توقيت عفن الخلايا العكسي (reverse transfection) ليتناسب مع حركية الالتصاق الأبطأ للخلايا الهرمة، مما يسمح بتفاعل مطول بين الخلايا ومركبات mRNA-lipid أثناء التصاق الخلايا. وتعمل هذه التعديلات مجتمعة على تحسين احتمالية الامتصاص الناجح للحمولة في مجموعة خلوية يصعب إجراء عملية عفن الخلايا لها في الظروف العادية.
يمثل الهروب الإندوسومي عقبة حرجة ثانية أمام توصيل mRNA في الخلايا الهرمة. تظهر الخلايا الهرمة زيادة في المحتوى الليزوزومي وتعزيزاً في نقل الشحنات التي يتم إدخالها عبر الالتقام الخلوي نحو الحجيرات التحللية17,28. يؤدي التعرض المؤقت للكلوروكين خلال الفترة المبكرة التي تلي عملية عفن الخلايا (transfection) إلى تحسين التوصيل الوظيفي من خلال تعزيز الهروب الإندوسومي وتقليل التحلل الليزوزومي لـ mRNA المُمتص داخلياً. وعلى الرغم من أن الجرعة المثلى ومدة التعرض قد تختلف باختلاف أنواع الخلايا، إلا أن النتائج المعروضة هنا تشير إلى أن تعزيز الهروب الإندوسومي يحسن بشكل كبير من كفاءة التوصيل في الخلايا الليفية الهرمة.
على المستوى الوظيفي، أدى الإعطاء المتكرر لـ hTERT modRNA إلى زيادات تراكمية في طول التيلومير النسبي، وإطالة العمر النسخي، وتقليل العديد من المظاهر المرتبطة بالشيخوخة. وأظهرت الخلايا التي تلقت علاج hTERT المتكرر انخفاضاً في نشاط SA-β-gal، وانخفاضاً في تعبير p16 وp21، وزيادة في تعبير Ki67، وتعزيزاً في القدرة التكاثرية مقارنة بمجموعات التحكم التي خضعت لعملية ترانسفكشن وهمية. ومن المهم ملاحظة أن نشاط التيلوميريز ظل عابراً، حيث عاد إلى مستويات قريبة من خط الأساس في غضون عدة أيام بعد عملية الترانسفكشن. ويتجنب ملف التعبير العابر هذا التعديل الجيني الدائم مع الاستمرار في توفير نشاط تيلوميريز كافٍ لتعزيز تأثيرات بيولوجية ملموسة. ومع ذلك، تجدر الإشارة إلى أن قياسات طول التيلومير النسبي التي تم الحصول عليها بواسطة MMqPCR لا تحدد كمياً وبشكل مباشر التمدد المطلق للتيلومير. وستوفر الدراسات المستقبلية التي تدمج تحليل قطعة التقييد النهائية، أو التهجين الموضعي الفلوري الكمي، أو Flow-FISH، أو منهجيات TeSLA تقييماً أكثر دقة لديناميكيات طول التيلومير بعد إيصال hTERT mRNA.
هناك عدة قيود تستوجب النظر. تتسم مجموعات الخلايا الهرمة بطبيعتها بالتغاير، وقد تختلف استجابتها لإيصال mRNA اعتماداً على طريقة تحفيز الهرم، ومصدر المتبرع، وتاريخ المزرعة الخلوية. وبناءً على ذلك، قد تختلف كفاءة عفن الخلية (transfection) ونتائج استعادة الشباب بين الأنظمة التجريبية. علاوة على ذلك، فإن إعادة تنشيط التيلوميراز تعالج بشكل أساسي الجوانب المعتمدة على التيلومير في الشيخوخة الخلوية ولا تصحح بشكل مباشر جميع سمات الهرم. وقد تستمر التغيرات المرتبطة بالشيخوخة مثل الانحراف فوق الجيني، والخلل الوظيفي في الميتوكوندريا، واختلال التوازن البروتيني، وإشارات الالتهاب المزمنة على الرغم من النجاح في إطالة التيلومير29,30. لذا، يجب النظر إلى هذا البروتوكول كأداة مستهدفة لدراسة الهرم المدفوع بالتيلومير وعكسه جزئياً، وليس كاستراتيجية شاملة لاستعادة الشباب.
تعتبر المعايير الموضحة في هذا البروتوكول بمثابة إرشادات عملية للخلايا البشرية الهرمة، وقد تم تطويرها من خلال تحسين تكراري استناداً إلى الدراسات المنشورة والخبرة التجريبية. قد تتطلب العوامل التي تشمل كثافة الخلايا، ونسبة كاشف عفن الخلية إلى mRNA، ووقت تكوين المعقد، وظروف الهروب الإندوسومي، تعديلاً بما يتناسب مع أنواع الخلايا الفردية والإعدادات التجريبية. لذا، ينبغي للباحثين اعتبار الظروف المذكورة نقطة انطلاق لعملية التحسين بدلاً من كونها نتائج نهائية قابلة للتطبيق بشكل عام.
باختصار، يوفر هذا البروتوكول إطاراً قابلاً للتكرار لإيصال mRNA المعدل لـ hTERT إلى الخلايا البشرية الهرمة باستخدام استراتيجية عفك ترانسفكشن (reverse-transfection) محسّنة لتناسب الخصائص الفسيولوجية للهرم الخلوي. يتيح هذا النهج إعادة تنشيط مؤقتة للتيلوميراز، وإطالة ملموسة في التيلوميرات، وتمديد العمر التكراري، وعكساً جزئياً للأنماط الظاهرية المرتبطة بالهرم الخلوي. يجب أن تقيم الدراسات المستقبلية مدى إمكانية تطبيق هذه الاستراتيجية على أنواع إضافية من الخلايا الهرمة، واستقصاء نهج الدمج مع تدخلات تجديدية تكميلية، واستكشاف إمكانية نقلها إلى منصات إيصال in vivo. وبذلك، توفر هذه الطريقة أداة قيمة لاستقصاء بيولوجيا التيلوميرات، وتجديد الخلايا، وآليات الهرم الخلوي في أبحاث الشيخوخة.
الإفصاحات
يُعد J.M.S. مؤسسًا مشاركًا ورئيسًا للمجلس الاستشاري العلمي لشركة Transposon Therapeutics.
شكر وتقدير
تم دعم هذا العمل من خلال منح المعاهد الوطنية للصحة (NIH) رقم P01 AG051449، وR01 AG016694، وR01 AG078925 الممنوحة لـ JS.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| مزيج هام الغذائي F-10 | Thermo Fisher | 11550043 | أوساط زراعة الخلايا. |
| 3´نظير بنية القبعة لـ RNA من نوع O-Me-m7G(5')ppp(5')G | New England Biolab | S1411L | بالنسبة لمعظم جزيئات الـ RNA، تعمل بنية القبعة (cap structure) على زيادة الاستقرار، وتقليل القابلية للتحلل بواسطة الإنزيمات الخارجية (exonuclease)، وتعزيز تكوين معقدات بدء ترجمة الـ mRNA. |
| 5-ميثيل-سيتيدين-5´ثلاثي الفوسفات (5-ميثيل-CTP) | New England Biolab | N0432S | تُستخدم النوكليوتيدات ثلاثية الفوسفات (NTPs) المعدلة بشكل شائع لتقليل الاستمناع في الحمض النووي الريبوزي (RNA) الناتج عن النسخ في المختبر. |
| طبق بـ 6 عيون | Corning | 351146 | لإنماء ومعالجة أحجام متوسطة إلى كبيرة من الخلايا الملتصقة أو المعلقة في ظروف تجريبية مستقلة. |
| جسم مضاد لـ Ki67 (SP6) | abcam | ab16667 | يُعبر عن Ki67 بشكل أساسي في الخلايا المتكاثرة. |
| طقم مقايسة الشيخوخة الخلوية (تلوين SA-beta-gal) | cellbiolabs | CBA-230 | تحديد الخلايا الهرمة باستخدام تحليل SA-βمقايسة صبغ -gal |
| أنابيب DNA ذات الربط المنخفض سعة 0.5 مل | Eppendorf | 022431005 | لاستعادة الحمض النووي الريبوزي منقوص الأكسجين (DNA) والحمض النووي الريبوزي (RNA) بكفاءة ودون أي فقدان |
| أنابيب DNA LoBind سعة 1.5 مل | Eppendorf | 22431021 | لاستعادة الحمض النووي الريبوزي منقوص الأكسجين (DNA) والحمض النووي الريبوزي (RNA) بكفاءة دون أي فقدان |
| DNase I، خالٍ من RNase (1 وحدة/μل) | Thermo Fisher | EN0521 | إن إنزيم DNase I الخالي من RNase هو إنزيم قطع داخلي (endonuclease) يقوم بهضم الحمض النووي DNA أحادي الخيط وثنائي الخيط. |
| إنزيم بولي (أ) بوليميراز لبكتيريا E. coli | New England Biolab | M0276S | تعمل إنزيم بولي (أ) بوليميراز 1 (PAP I) في بكتيريا Escherichia coli بشكل أساسي كمحفز لإضافة بقايا أحادي فوسفات الأدينوزين (AMP) إلى الطرف '3 لجزيئات RNA بشكل مستقل عن القالب. |
| مصل جنين البقر | Thermo Fisher | A5256701 | مكمل المصل للمستنبتات الخلوية |
| طقم HiScribe T7 ARCA mRNA | New England Biolabs | E2065S | صُممت مجموعة HiScribe T7 ARCA mRNA Kit (مع التذييل) للإنتاج السريع لـ mRNA ذي غطاء ARCA وذيل poly(A) في المختبر. ويتم تخليق mRNA المقنّع عن طريق دمج نظير الغطاء المضاد للعكس (ARCA) أثناء عملية النسخ باستخدام إنزيم T7 RNA Polymerase. |
| طقم HiScribe T7 mRNA مع كاشف CleanCap Reagent AG | New England Biolabs | E2080S | تتيح أطقم HiScribe T7 mRNA Kits مع كاشف CleanCap Reagent AG إنتاجاً سريعاً ومبسطاً لنسخة واحدة أو نسخ متعددة من الحمض الريبي النووي المرسال (mRNA)، بإنتاجية نموذجية تبلغ ≥90 μجم لكل تفاعل، |
| إنزيم LongAmp Hot Start Taq DNA Polymerase | New England Biolabs | M0534S | يوفر إنزيم LongAmp Hot Start Taq DNA Polymerase أداءً استثنائيًا مع نواتج التضخيم الطويلة. |
| إنزيم النسخ العكسي لفيروس سرطان الدم لدى الفئران (M-MuLV Reverse Transcriptase) | New England Biolab | M0253L | يقوم إنزيم النسخ العكسي M-MuLV بتخليق شريط حمض نووي ريبوزي منقوص الأكسجين مكمل يبدأ من بادئ، باستخدام إما الحمض النووي الريبوزي (تخليق cDNA) أو الحمض النووي ريبوزي منقوص الأكسجين أحادي الشريط كقالب. |
| طقم تنقية الحمض النووي الريبوزي Monarch Spin (50 μز) | New England Biolabs | T2040L | الوظيفة الرئيسية لجهاز Monarch® طقم تنقية الحمض النووي الريبي بالدوران (50 μز) هي تنقية وتركيز ما يصل إلى 50 μغرام من الحمض النووي الريبوزي (RNA) عالي الجودة من التفاعلات الإنزيمية أو مخاليط الاستخلاص. |
| مزيج NEBuilder HiFi DNA Assembly الرئيسي | New England Biolabs | E2621L | يسمح مزيج NEBuilder HiFi DNA Assembly Master Mix بالتجميع السلس لقطع متعددة من الحمض النووي (DNA)، بغض النظر عن طول القطعة أو توافق النهايات. وله فائدة كبيرة لمجتمع البيولوجيا التركيبية، وكذلك في الاستنساخ أحادي الخطوة لقطع متعددة، وذلك نظراً لسهولة استخدامه ومرونته وتنسيق المزيج الرئيسي البسيط. |
| Opti-MEM - وسط غذائي منخفض المصل | Thermo Fisher | 31985070 | لرفع كفاءة ترانسفكشن الخلايا إلى الحد الأقصى أثناء تكوين معقدات الليبيد والحمولات. حيث يعمل كبيئة محددة كيميائياً ومحسنة تحافظ على حيوية الخلايا الثديية بشكل عالٍ، مع تقليل الحاجة إلى المكملات المصلية القياسية. |
| محلول ملحي منظم بالفوسفات (PBS)، بدرجة حموضة 7.4 | Thermo Fisher | 10010023 | يتمثل الاستخدام الوظيفي الأساسي للمحلول الملحي المنظم بالفوسفات (PBS) عند درجة حموضة 7.4 في الحفاظ على استقرار درجة الحموضة والتوازن الاسموزي للخلايا الثديية والجزيئات البيولوجية. |
| شرائط تفاعل البوليميراز المتسلسل (PCR) | Thermo Fisher | AB0776 | يتمثل الاستخدام الوظيفي الأساسي لأنابيب تفاعل البوليميراز المتسلسل (PCR) الشريطية (والتي تكون عادةً بتنسيق 8 أنابيب أو 12 أنبوباً في الشريط الواحد) في احتواء تفاعلات سائلة ذات أحجام صغيرة أثناء عملية التدوير الحراري عالية الإنتاجية. |
| هيدروبروميد بولي-إل-لايسين | Millipore Sigma | P4707-50ML | يتمثل الاستخدام الوظيفي الأساسي لهيدروبروميد بولي-إل-لايسين (PLL) لالتصاق الخلايا في طلاء الأسطح الصلبة سالبة الشحنة (مثل الزجاج أو البلاستيك) لإنشاء ركيزة عالية الالتصاق وموجبة الشحنة. |
| بسودويوريدين-5´ثلاثي الفوسفات (سودو-UTP) Ψيوريدين ثلاثي الفوسفات (UTP) | New England Biolabs | N0433S | سودويوريدين-5´تُستخدم ثلاثي فوسفات النوكليوتيد المعدلة (Pseudo-UTP) بشكل شائع لتقليل الاستجابة المناعية للحمض النووي الريبي (RNA) الناتج عن عملية النسخ في المختبر. |
| مجموعة محلول الريبونوكليوتيدات | New England Biolabs | N0450L | أربعة محاليل منفصلة من ATP وGTP وCTP وUTP |
| مثبط ROCK Y-27632 (ثنائي هيدروكلوريد) | تقنيات الخلايا الجذعية | 72302 | يعتبر Y-27632 مثبطاً عالي الفعالية وانتقائياً ونفاذاً للخلايا لبروتين كيناز المرتبط بـ Rho والمحتوي على لولب ملفوف (ROCK). يثبط Y-27632 كلاً من ROCK1 (Ki = 220 nM) وROCK2 (Ki = 300 nM) عن طريق منافسة ATP على الارتباط بالموقع التحفيزي. |
| ماء بدرجة نقاء مناسبة لتفاعل البلمرة المتسلسل بالنسخ العكسي (RT-PCR Grade Water) | Thermo Fisher | AM9935 | إن الاستخدام الوظيفي الأساسي للمياه بدرجة نقاوة RT-PCR (والتي غالباً ما تسمى مياه خالية من النوكلياز) هو أن تعمل كمذيب فائق النقاء للمقايسات الإنزيمية الحساسة، حيث يمكن لأي تلوث أن يؤدي إلى تحلل العينة أو تثبيط عملية التضخيم. |
| SUPERase·مثبط RNase | Thermo Fisher | AM2694 | يعد مُثبط RNase من نوع SUPERase In مُثبطًا بروتينيًا من أصل غير بشري، يرتبط بشكل غير تساهمي بإنزيمات RNase الأكثر شيوعًا وإثارة للمشاكل ويثبطها، بما في ذلك RNase A وB وC و1 وT1. |
| صبغة SYBR Green I لهلام الأحماض النووية | Thermo Fisher | S7563 | الاستخدام الوظيفي الأساسي لـ SYBR™ يُستخدم صبغ الأحماض النووية "Green I Nucleic Acid Gel Stain" لتصور وقياس كمية الحمض النووي مزدوج السلسلة (dsDNA) في هلامات الأجاروز أو البولي أكريلاميد. |
| طقم ترانسفيكشن TransIT-mRNA | Mirusbio/ Millipore Sigma | MIR 2250 | كاشف ترنسفكشن (نقل جيني) عالي الكفاءة ومنخفض السمية للحمض النووي الريبوزي (RNA) كبير الحجم |
| طقم TRAPeze للكشف عن التيلوميريز | Millipore Sigma | S7700 | يُعد مقايسة TRAP (بروتوكول تضخيم التكرارات التيلوميرية) طريقة حساسة وشائعة الاستخدام تعتمد على تفاعل البوليميراز المتسلسل (PCR) للكشف عن نشاط التيلوميراز وقياسه في الخلايا وعينات الأنسجة الثديية. وتتضمن هذه المقايسة ثلاث خطوات رئيسية: إطالة التكرارات التيلوميرية بواسطة إنزيم التيلوميراز، وتضخيم هذه النواتج باستخدام تفاعل PCR، ثم الكشف عنها لاحقاً. |
| تربسين-إيديتات ثنائي الصوديوم (0.05%)، أحمر الفينول | Thermo Fisher | 25300054 | لفصل الخلايا الثديية الملتصقة عن أوعية الزرع أثناء عمليات تمرير الخلايا الروتينية (الزراعة الفرعية) وحصادها. |
المراجع
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.