يهدف هذا البروتوكول إلى تقييم تطور الميلانوما في كائنات الزينوغرافيات من سمك الزرد باستخدام الرنين البارامغناطيسي للإلكترونات في الجسم الحي (الطيف لاكتشاف وتحليل جذور الميلانين)، مقدما نهجا جديدا لأبحاث الميلانوما قبل السريرية والتقييم العلاجي.
مقالة منهجية
الرنين البارامغناطيسي للإلكترونات في نطاق X لمراقبة التغيرات الجذرية المرتبطة بالميلانين في الميلانين في الغروب الفضائية لميلانوما سمك الزرد في الجسم الحي
في هذه المقالة
ملخص
الملخص
يقدم هذا البروتوكول تطبيقا جديدا في الجسم الحي لتحليل طيف الرنين البارامغناطيسي الإلكتروني في نطاق X (9.5 جيجاهرتز) لمراقبة ديناميكيات الجذور المرتبطة بالميلانين في نماذج الميلانوما الزرحية (Danio rerio) الزينوغرافت. هدف هذه الطريقة هو تمكين التقييم المباشر والخالي من العلامات والكمية لتغيرات الأكسدة المحازنة المرتبطة بالميلانين أثناء تطور الجنين، والتفاعلات بين الورم والمضيف في نموذج فقاريات ذي صلة فسيولوجيا.
من خلال الاستفادة من الخصائص البارامغناطيسية الجوهرية للميلانين، يوفر هذا النهج معلومات كيميائية حيوية مكملة لا يمكن الحصول عليها باستخدام التصوير التقليدي القائم على الفلورة فقط. من المهم أن إشارة الرنين البارامغناطيسي المكتشفة للإلكترونات تعكس الجزء النشط في الأكسدة والاختزاز من بوليمر الميلانين، وبالتالي فهي قراءة حساسة للاختزاز بدلا من كونها مقياسا مباشرا لكمية الصبغة الكلية.
تم التحقق من أداء الطريقة من خلال الكشف الانتقائي عن الجذور المرتبطة بالميلانين في الأجنة البرية المصبوغة، وغياب الإشارة في مجموعة التحكم المصابة بالمهق، والتغيرات التطورية ذات الدلالة الإحصائية في إشارة الرنين البارامغناطيسي للإلكترون عبر النسخ البيولوجية المستقلة، ونتائج مماثلة تم الحصول عليها باستخدام حاملات عينات بديلة وعينات مجمدة.
من خلال دمج طياف الرنين المغناطيسي الإلكتروني في نطاق X مع نماذج زينوغرافت لسمك الزرد، يوفر هذا البروتوكول منصة قابلة للتوسع، ومواتية أخلاقيا، وقابلة للنقل لأبحاث الميلانوما قبل السريري، ودراسات بيولوجيا الأكسدة والاختزال، وتقييم التدخلات التي تعدل تكوين الميلانوجين.
المقدمة
الهدف العام من هذه الدراسة هو تطوير والتحقق من طريقة موثوقة في الجسم الحي لاكتشاف وقياس جذور الميلانين في نموذج زينوغرافت الأجنة لسمك الزرد (Danio rerio) مع مطيافية الرنين البارامغناطيسي الإلكتروني بنطاق X (9.5 جيجاهرتز). يهدف هذا النهج إلى تمكين التقييم المباشر والكمي لعمليات الأكسدة الاختزال المرتبطة بالميلانين أثناء تطور الميلانوما واستجابة للتدخلات الدوائية.
الميلانين هو مجموعة غير متجانسة من البوليمرات الحيوية المسؤولة عن التصبغ في الجلد والشعر والعينين عبر مجموعة واسعة من الكائنات الحية. من بين أشكاله، يلعب الإيوملانين والفيوميلانين أدوارا مميزة في علم الأحياء. يظهر إيوميلانين خصائص مضادة للأكسدة وحماية ضوئية، بينما يمكن للفيوميلانين تعزيز إنتاج أنواع الأكسجين التفاعلية (ROS)، خاصة تحت التعرض للأشعة فوق البنفسجية 1,2,3. كل من تأثيرات مضادات الأكسدة والأكسدة الزائدة مرتبطة بتكوين جذور الميلانين. على المستوى الجزيئي، الميلانين هو بوليمر نشط بالأكسدة غير المتجانسة ويتكون من وحدات فرعية تحتوي على الإندوليك والكينون، ويمكن أن يوجد في حالات فيزيائية كيميائية متعددة، بما في ذلك الكينون المؤكسد بالكامل، والسيميكينون المختزل جزئيا، والهيدروكينون المختزلبالكامل 4,5,6. الوفرة النسبية لأنواع جذور السيميكينون ديناميكية وتعتمد على الظروف الفيزيائية الكيميائية المحلية، بما في ذلك توفر الأكسجين، وأنواع الأكسجين التفاعلية (ROS)، وتفاعلات أيونات المعادن، ودرجة الحموضة، ودرجة البلمرة، ونضج الميلانوسوم 7,8,9.
لذا، هناك حاجة إلى طرق تمكن من التقييم الكمي لهذه التركيزات الجذرية لفهم أفضل للتغيرات في حالة الأكسدة والاختزاز للميلانين. في الميلانوما، يساهم اختلال تنظيم تكوين الميلانوسين في الخلايا الميلانوسيابية في بدء وتقدم الميلانوما. غالبا ما يرتبط هذا الخلل بتغيرات حالة الأكسدة والاختزال، والتي تعتمد على الظروف الدقيقة البيئية المحلية. وهذا يجعل نشاط الأكسدة المحازنة للميلانين عاملا مهما في بيولوجيا الورم10. لذلك، فإن الطرق التي تمكن من التقييم المباشر لجذور الميلانين ضرورية لفهم مسببات الميلانوما والاستجابة العلاجية.
تمثل أجنة سمك الزرد نموذجا قويا في الجسم الحي لدراسة التصبغات والميلانوما. حتى 5 أيام بعد الإخصاب (120 ساعة بعد التخصيب (HPF)، لا تصنف كحيوانات محمية بموجب التوجيه 2010/63/EU، مما يسمح بإجراء تجارب عالية الإنتاج دون موافقة أخلاقية رسمية. التطور السريع، والشفافية البصرية، والبروتوكولات الراسخة تجعل سمك الزرد مناسبا جدا للدراسات السمية والدوائية11,12. ومن المهم أن هذه السمكة تشترك في تشابهات جينية وفسيولوجية كبيرة مع البشر، والمسارات الرئيسية المشاركة في الميلانوجين محفوظة13. بينما تنتج أسماك الزرد البرية بشكل رئيسي الإيوملانين وتعمل كنموذج للتصبغ الفسيولوجي، فإن نماذج الزينوغرافت — المبنية على زرع خطوط خلايا الميلانوما التي تنتج الإيوميلانين والفيوميلانين — تمكن من دراسة تطور الورم واستجابات الأدوية في الثدييات في بيئة دقيقة فسيولوجية ذات صلة14،15.
حاليا، التصوير القائم على الفلورة هو الطريقة القياسية المستخدمة في دراسات الزينوغرما الزهرية الميلانومي. يتيح هذا النهج التصور في الوقت الحقيقي لنمو الورم وهجرته واستجابة العلاج عبر أصباغ فلورية، مثل ثنائي كلوروديهيدروفلوريسين ثنائي الأسيتات (DCFDA) أو الخطوط المعدلة وراثيا (Grx1-roGFP2، HyPer)16,17. ومع ذلك، توفر تقنيات الفلورة بشكل أساسي معلومات شكلية ومكانية ومحدودة في قدرتها على التقاط العمليات الكيميائية الحيوية وعمليات الأكسدة والاختزال المرتبطة بالتأكسد. بالإضافة إلى ذلك، قد تتأثر قراءاتهم بتبييض الضوئي، وتسرب الصبغة، والتداخل من مركبات الأدوية الفلورية، وتغيرات محتملة في فسيولوجيا الخلايا الناتجة عن وضع العلامات. والأهم من ذلك، أن الطرق المعتمدة على التألق لا توفر معلومات مباشرة عن جذور الميلانين أو سلوكها الديناميكي في الأكسدة والاختزال (الأكسدة).
يقدم مطيافية الرنين البارامغناطيسي للإلكترون نهجا تحليليا فريدا وقويا، حيث يمكن من الكشف المباشر وقياس الأنواع البارامغناطيسية، بما في ذلك الجذور المستقرة المرتبطة بالميلانين. يحتوي كل من الإيوميلانين والفيوميلانين على أجزاء من نصف الكينون تولد إشارات رنين مغناطيسية إلكترونية مميزة، وقد تم استكشاف المساهمة النسبية لهذه الإشارات كمؤشر حيوي لحالة التصبغ وتطور الميلانوما18,19. ومن المهم أن نسبة السيميكينون النشطة في الأكسدة فقط تساهم مباشرة في الإشارة المكتشفة، فإن مطيافية الرنين البارامغناطيسي للإلكترونات توفر معلومات مكملة للاختبارات التقليدية المتعلقة بتكوين الميلانوجين، مثل قياس محتوى الميلانين، أو نشاط التيروزيناز، أو تحليل التصبغ. وبناء عليه، يجب تفسير شدة إشارة الرنين البارامغناطيسي للإلكترون كقراءة حساسة للأكسدة والاختزال لحالة الميلانين الوظيفية، متأثرة بالظروف الفيزيائية والكيميائية المحلية، بدلا من كونها مقياسا مباشرا لوفرة الصبغة الكلية.
بينما أجريت معظم دراسات الرنين البارامغناطيسي للإلكترون في الجسم الحي باستخدام أنظمة النطاق L (شكل من أشكال مطيافية الرنين البارامغناطيسي الإلكتروني يستخدم الموجات الدقيقة منخفضة التردد (حوالي 1–2 جيجاهرتز) لدراسة الأنواع البارامغناطيسية، خاصة في العينات الكبيرة حيث يتطلب اختراق إشارة أعمق)، 20— يوفر الرنين البارامغناطيسي للإلكترونات في النطاق X دقة طيفية أعلى وحساسية للعينات ذات الحجم الصغير، مما يجعلها مناسبة بشكل خاص لأجنة سمك الزرد. علاوة على ذلك، فإن التطورات التقنية الأخيرة، بما في ذلك أنظمة الكشف متعددة التوافقيات، تحسن جودة الإشارة بشكل كبير وتمكن من إجراء قياسات موثوقة في عينات بيولوجية صعبة (صغيرة وأكثر ترطيبا)21,22. حجم الرنان في نطاق X هو الحجم المناسب لعدد قليل من أجنة سمك الزرد، والذي، مع دقة أعلى من نظام L-band، يمكن تقليل عدد الحيوانات المستخدمة. وهذا مهم بشكل خاص عند العمل مع نماذج زينوغرافت.
على الرغم من هذه المزايا، لا يزال تطبيق الرنين البارامغناطيسي للإلكترونات في نطاق X على أجنة سمك الزرد الحية وقويات الميلانوما في هذا النموذج غير مستكشف إلى حد كبير. قدمت الدراسات المخبرية باستخدام خطوط خلايا الميلانوما، مثل B16F10، رؤى قيمة حول خصائص جذور الميلانين؛ ومع ذلك، فهي تفتقر إلى السياق الفسيولوجي المعقد للكائن الحي23،24. على وجه الخصوص، تدخل البيئة الدقيقة لسمك الزرد عوامل حاسمة—مثل تدرجات الأكسجين، والتفاعلات بين الخلايا والخلية، والنشاط الأيضي الديناميكي—قد تؤثر بشكل كبير على سلوك جذور الميلانين25,26. لذلك، هناك حاجة واضحة لتطوير والتحقق من منهجية في الجسم الحي، تتيح القياس المباشر لجذور الميلانين تحت ظروف فسيولوجية ذات صلة.
في هذه الدراسة، نقدم بروتوكولا مفصلا لتطبيق مطيافية الرنين المغناطيسي الإلكتروني في نطاق X على أجنة سمك الزرد، بما في ذلك نماذج الزينوغرافت التي تحتوي على خطوط خلايا الميلانوما B16F10 وB16F1. توفر هذه الطريقة نهجا تكميلا للتصوير القائم على الفلورة من خلال تمكين التقييم الكمي لمحتوى جذور الميلانين، مما يوفر فهما لديناميكيات الأكسدة والاختزال. من خلال دمج المعلومات الهيكلية والمكانية من تقنيات الفلورة مع رؤى كيميائية حيوية من الرنين المغناطيسي الإلكتروني البارامغناطيسي، تعزز هذه الاستراتيجية المشتركة القدرة التحليلية لنماذج سمك الزرد في أبحاث الميلانوما قبل السريري. ومن المهم أن إشارة الرنين البارامغناطيسي للإلكترونات التي تكتشف في هذا البروتوكول تعكس الجزء النشط بالأكسدة والاختزال في بوليمر الميلانين. وبناء عليه، يجب تفسير شدة الإشارة كقراءة حساسة للأكسدة والاختزاز بدلا من مقياس مباشر لمحتوى الميلانين الكلي، واعتبارها مع محتوى الصبغة الكلي مؤشرا على تحولات الأكسدة والاختزاز المرتبطة بالميلانين. وبسبب نهج قياس الكائن الحي بالكامل والعدد المحدود من خلايا الميلانوما المحقونة، فإن الإشارة المكتشفة تمثل بشكل أساسي التغيرات الجذرية المرتبطة بالميلانين على مستوى جنين/يرقة سمك الزرد بأكمله، وليس إشارة خاصة بالميلانوما تنشأ حصريا من الطعم الغريب. هذا التمييز ذو صلة خاصة في الأنظمة البيولوجية الديناميكية، حيث قد تحدث تحولات في حالة أكسدة الميلانين بشكل مستقل عن التغيرات في كمية الصبغة الكلية.
البروتوكول
تم استخدام أجنة سمك الزرد (Danio rerio) في هذه الدراسة حتى 5 أيام بعد الإخصاب (120 حصان قدم). في هذه المرحلة التطورية، لا تعتبر الأجنة حيوانات محمية بموجب التوجيه 2010/63/الاتحاد الأوروبي، وبالتالي لا تتطلب التجارب تفويضا رسميا من لجنة أخلاقيات. ومع ذلك، تم تنفيذ جميع الأعمال وفقا لممارسات المختبر الجيدة والإرشادات المؤسسية لرعاية واستخدام سمك الزرد.
1. تحضير المواد الكيميائية وصيانة خطوط خلايا الميلانوما الفأرية B16F1 وB16F10
- تحضير الوسط الكامل
- أضف 50 مل من مصل البقر الجنيني (FBS) و5.5 مل من محلول البنسلين-ستريبتوميسين إلى 500 مل من وسط النسر المعدل (DMEM) من Dulbecco.
- سخن الوسط بالكامل إلى 37 درجة مئوية قبل الاستخدام.
ملاحظة: استخدم المحاليل المسخنة مسبقا لتقليل الإجهاد الحراري أثناء التعامل مع الخلية.
- إذابة وبدء الزراعة من الخلايا المجمدة
- قم بإذابة القارورة المجمدة بسرعة باستخدام الخلايا في حمام ماء بدرجة حرارة 37 درجة مئوية (~1–2 دقيقة).
- قم بتعقيم الجزء الخارجي من القارورة بنسبة 70٪ إيثانول. قم بجميع الخطوات التالية تحت ظروف معهرة.
- انقل تعليق الخلية إلى أنبوب مخروطي بحجم 15 مل يحتوي على 9 مل من وسط كامل مسخن مسبقا. احتفظ بجزء صغير من التعليق الأصلي لاختبار الميكوبلازما.
- خلايا الطرد المركزي في أنبوب الطرد المركزي عند 200 × جرام لمدة 5 دقائق في درجة حرارة الغرفة.
- استنشاق المادة الفائقة لإزالة ثاني كبريتات ثنائي ميثيل (DMSO؛ من وسط التجميد).
- أعد تعليق حبيبة الخلية في 10 مل من الوسط الطازج والمسخن مسبقا.
- انقل الخلايا إلى طبق بتري بحجم ⌀9 سم وقم بتدوير خفيف بحركة رقم ثمانية لتوزيع الخلايا بشكل متساو.
- حضن الخلايا عند 37°C، و5٪ CO، ورطوبة ≥95٪ طوال الليل.
- استبدل وسط الزراعة بوسط جديد كامل مسخن مسبقا بعد 16–24 ساعة.
- استمر في الحضانة حتى تصل الخلايا إلى >80٪ من التلاقط. تابع إلى الزراعة الفرعية (انظر الخطوة 1.3).
ملاحظة: بدلا من أطباق بتري، قد تستخدم أوعية زراعة معقمة (مثل قوارير T). إذا كانت الأطباق أو القوارير الصغيرة مفضلة، قم بتقسيم الخلايا بشكل متناسب للحفاظ على نفس مساحة سطح الزراعة النسبية.
- الزراعة الفرعية للخلايا
- أزل وسط الزراعة من طبقة الخلية الأحادية. احتفظ بمقياس صغير لاختبار الفخذ الميكوبلازما.
- أضف 10 مل من محلول ملحي مخزن بالفوسفات (PBS) إلى طبق الزراعة.
- دع PBS تبقى على الخلايا في درجة حرارة الغرفة لمدة 3–5 دقائق للسماح بإزالة بروتينات المصل بالكامل.
- استنشق PBS بلطف مع الحرص على عدم إزاحة الخلايا.
- أضف 1 مل من مادة تفكك الخلايا وحضن عند 37°C حتى تتجمع الخلايا وتتفكك (لا تتجاوز 5 دقائق من وقت الحضانة).
- أضف 1 مل من الوسط الكامل المسخن مسبقا لوقف الانفصال الإنزيمي.
- قم بعمل ماصة بلطف لتعليق الخلية للأعلى والأسفل عدة مرات للحصول على تعليق خلية واحدة.
- نقل الخلايا إلى طبق بتري جديد أو قارورة T تحتوي على وسط كامل مسخن مسبقا بنسبة تقسيم 1:4 إلى 1:10. قم بتدوير حركة الرقم ثمانية بلطف لتوزيع الخلايا بشكل متساو.
- حضن الخلايا عند 37 درجة مئوية، 5٪ CO، ورطوبة ≥95٪.
ملاحظة: استخدم المحاليل المسخنة مسبقا (37 درجة مئوية) ونفذ جميع الإجراءات تحت ظروف معقمة في خزانة أمان بيولوجية من الفئة الثانية مع ارتداء معدات الحماية الشخصية المناسبة. زراعة الخلايا الفرعية كل 2-3 أيام أو عند التقاء بنسبة 80–90٪. استخدم الخلايا منخفضة الممر (
- الحفظ بالتجميد (تخزين البنوك) للخلايا
- استخدم خلايا صحية تنمو بشكل أسي (~70٪–80٪ متداخلة).
- اجمع الخلايا كما هو موضح في الخطوات 1.3.1–1.3.7 وانقل تعليق الخلية إلى أنبوب مخروطي بحجم 15 مل.
- قم بعمل الطرد المركزي للخلايا عند 300 × جرام لمدة دقيقتين.
- إزالة المادة الفائقة وأعد تعليق الخلايا في وسط الحفظ بالتبريد عند 1–5 × 10⁶ خلايا/مل.
- تعليق خلية Aliquot في التجميد الموسوم (خط الخلية، رقم الممر، التاريخ).
- قم بتجميد القوارير طوال الليل عند -80°م باستخدام حاوية تجميد بمعدل تحكم معين.
- كبديل، استخدم طريقة عزل متداخلة: أدخل القوارير في رف صغير من الستايروفوم مصمم لأنابيب 1.5/2.0 مل، ثم يوضع داخل صندوق بوليسترين أكبر.
ملاحظة: تم تصميم هذا التكوين ذو الطبقتين لتوفير التخزين الحراري المطلوب لتحقيق معدل تبريد تدريجي، وهو أمر حاسم لنجاح الحفظ بالتجميد.
ملاحظة: يجب التعامل مع المواد المبردة باستخدام قفازات معزولة وحماية للوجه. اتبع الإرشادات المؤسسية للتعامل مع النيتروجين السائل والنفايات الخطرة.
- كبديل، استخدم طريقة عزل متداخلة: أدخل القوارير في رف صغير من الستايروفوم مصمم لأنابيب 1.5/2.0 مل، ثم يوضع داخل صندوق بوليسترين أكبر.
- بعد الحضانة الليلية عند -80 درجة مئوية، انقل القوارير إلى النيتروجين السائل للتخزين طويل الأمد. يمكن تخزين الكريوفيالات عند -80 درجة مئوية للتخزين قصير الأمد.
- اختبار الميكوبلازما
- اجمع كمية صغيرة من وسط الزراعة أو تعليق الخلايا أثناء الذوبان، أو الزراعة الفرعية، أو الحفظ بالتجميد.
- قيم تلوث الميكوبلازما باستخدام مجموعة كشف معتمدة تعتمد على PCR أو إنزيمية وفقا لتعليمات الشركة المصنعة.
- استخدم الزراعة السلبية للميكوبلازما في التجارب أو لتخزين خطوط الخلايا.
- سجل النتائج وتخلص أو عزل أي مزرعة ملوثة حتى يتم التخلص منها.
ملاحظة: قم بإجراء اختبار منتظم للتلوث بالميكوبلازما.
2. زرع الخلايا السرطانية في يرقات سمك الزرد
- تحضير خلايا السرطان للزراعة
- نما الخلايا حتى ~80٪ من التلاصق.
- احصد الخلايا كما هو موضح في الخطوات 1.3.1–1.3.7.
- انقل تعليق الخلية إلى أنبوب طرد مركزي دقيق بسعة 2 مل.
- قم بعمل الطرد المركزي على حرارة 300 × جرام لمدة دقيقتين في درجة حرارة الغرفة.
- أزل الفائق وغسل حبيبات الخلية ب 1 مل من PBS المعقم.
- كرر الخطوة 2.1.4–2.1.5 وأعد تعليق الخلايا في PBS المتبقية. التعليق الأكثر كثافة سيعطي ترسبا أقل.
- قم بتحريك التعليق للأعلى والأسفل بلطف حتى يتم الحصول على تعليق خلية واحدة متجانس.
ملاحظة: استخدام رأس الماصة بسعة 200 ميكرولتر مبلل مسبقا (ممهد) بمحلول بولي فينيل بيروليدون (PVP) بنسبة 45٪ لأنه يساعد على منع ترسيب الخلايا داخل إبرة الحقن. - حافظ على تعليق الخلية على الثلج حتى الحقن.
ملاحظة: إذا حدث تكتل خلوي، مرر تعليق الخلية عبر مصفاة خلوية بحجم 35–40 ميكرومتر و/أو عالج الخلايا ب 0.01–0.05 ملغ/ملليتر DNase I.
- إنتاج بيض سمك الزبرا
- في المساء السابق لجمع البيض المتوقع، ضع سمك الزرد البالغ في أحواض تكاثر تحتوي على مياه النظام (مجهزة للتكاثر).
- أبق الخزانات في ظلام تام طوال الليل؛ هذا يضمن أن الظهور يتم في صباح اليوم التالي، عندما تضيء الأضواء.
- ستتكاثر السمكة بعد بداية الضوء في اليوم التالي. اجمع البيض عن طريق صب ماء الحوض عبر مصفاة الشاي.
- اشطف البيض جيدا بوسط E3 (5 ملليمولار NaCl، 0.17 ملليمولار KCl، 0.33 ملليمولار CaCl2، 0.33 ملليموغليوم MgSO4).
- انقل البيض المخصب إلى أطباق بتري بحجم 9 سم تحتوي على 20–25 مل من وسط E3. لا تضع أكثر من 50 جنينا في كل طبق.
- حضن الأجنة عند 28 درجة مئوية حتى الاستخدام الإضافي.
ملاحظة: حرص على إبقاء البيض رطبا طوال الوقت.
- تحضير جنين سمك الزرد
- إزالة الكوريونات يدويا من الأجنة عند حوالي 36 حصان قوة (hpf).
- استخدم زوجين من ملقط المجوهرات فائق النقة رقم 5. بزوج واحد، اضغط الكوريون بقوة ولكن بلطف لتثبيت البيضة. استخدم الزوج الثاني من الملقط للإمساك بالكوريون بالقرب من الزوج الأول.
- اسحب الملقط بلطف في اتجاهين متعاكسين لتكوين تمزق صغير. وسع الفتحة بحذر حتى ينزلق الجنين للخارج.
- تخدير اليرقات المفصلة بمحلول تريكائين جاهز حديثا وفقا لبروتوكولات سمك الزردالمعروفة 27.
ملاحظة: الأجنة التي لا تحتوي على الكوريونات هشة ولزجة ويجب منعها من التعرض للهواء. استخدم الماصات الزجاجية وأطباق بتري المطلية بالأجاروز أثناء العمل مع سمك الزرد <3 dpf.
- إزالة الكوريونات يدويا من الأجنة عند حوالي 36 حصان قوة (hpf).
- جهز إبر الحقن الدقيق
- اسحب الشعيرات الدموية الزجاجية الخالية من الخيوط باستخدام جهاز سحب مع معايير محددة وفقا لإرشادات الشركة المصنعة.
- باستخدام ملقط دقيق، اكسر رأس الإبرة على خطوتين: أولا، قم بعمل كسر صغير عند رأس الإبرة الدقيق. ثم قم بإجراء كسر ثان بالضبط حيث تعلق الخلايا. هذا يخلق فتحة مثالية كبيرة بما يكفي فقط لمرور الخلايا، مع البقاء صغيرة قدر الإمكان.
- املأ الإبرة بتعليق الخلية باستخدام ميكرولادر طويل - وهو طرف لملء الشعيرات الدموية الزجاجية. تجنب إدخال فقاعات الهواء.
- استخدم أعلى كثافة خلوية ممكنة (أقصى تركيز) للتعليق؛ يتم التحكم في الجرعة المحددة من الخلية عبر إعدادات الحقن.
- قم بتحميل الإبرة بشكل متكرر بأقلام صغيرة (aliquots)، مما يحد من عمود التعليق داخل الإبرة إلى ارتفاع أقصى يبلغ 2 مم. يقلل هذا من ترسيب الخلايا داخل الإبرة، مما يضمن توزيعا أكثر تجانسا وتوصيل متسق أثناء الحقن.
- قم بتركيب الإبرة المحملة على حامل جهاز الحقن الدقيق.
- قم بضبط ضغط الحقن ومدة النبضة لتوفير العدد المطلوب من الخلايا لكل حقنة (يجب ألا يتجاوز الحجم الكلي لتعليق الخلية المحقون حجم عين جنين سمكة الزرد عند وقت الحقن).
ملاحظة: تم وصف أمثلة مفصلة لمنهجية حقن زينوغرافت في سمك الزرد سابقا من قبل مؤلفين آخرين28.
- إجراء الحقن الدقيق
- حقن تعليق الخلية في كيس الصفار أو الدورة الدموية وفقا للتصميم التجريبي.
- توليد أكثر من 1000 خلية لكل جنين تحت ظروف حقن معايرة.
ملاحظة: يجب تضمين الأجنة المحقونة بالمحلول الملحي المخزن بالفوسفات (PBS) كعناصر تحكم سلبية.
- التعامل بعد الحقن
- حافظ على الجنين أو اليرقات المحقون عند 28-32 درجة مئوية
- راقب بقاء اليرقات وتطورها يوميا تحت منظار تشريح.
- تقييم تكاثر وهجرة خلايا الورم في النقاط الزمنية التجريبية المختارة.
- تابع قياس الرنين المغناطيسي الإلكتروني (EPR) كما هو موضح في القسم 3.1 أو تخزين العينة كما هو موضح في القسم 2.7
ملاحظة: تخلص من اليرقات التي أصيبت بحقنة أو حقن غير صحيح. اتبع جميع إرشادات السلامة الحيوية ورعاية الحيوانات في المؤسسات. تعامل مع الترايكاين والنفايات البيولوجية وفقا لبروتوكولات السلامة. التخلص من المواد الخطرة وفقا للأنظمة.
- جمع عينات للتجميد
- قم بقتل اليرقات بالغمر في محلول تريكائين مبرد لمدة لا تقل عن 3 دقائق.
- نقل مجموعات من 10 يرقات إلى أنابيب الطرد المركزي الدقيق بحجم 1.5 مل. أزل الوسط الزائد من كل أنبوب.
- تخزين العينات عند -20 درجة مئوية حتى تحليل الرنين البارامغناطيسي للإلكترون.
3. اكتشاف جذور الميلانين بواسطة مطيافية الرنين المغناطيسي الإلكتروني
- اكتشاف جذور الميلانين في يرقات سمك الزرد في الجسم الحي.
- شغل مطياف الرنين البارامغناطيسي الإلكتروني في نطاق X والسماح للنظام بالاستقرار وفقا لتعليمات الشركة المصنعة.
- نقل 20–30 يرقة من سمك الزرد (3–5 أيام بعد التخصيب، DPF) إلى أنبوب طرد مركزي دقيق بسعة 1.5 مل.
- املأ الشعيرات الدموية المسطحة ليرقات سمك الزرد ب 100 ميكرولتر من متوسط E3.
- أغلق أحد طرفي الشعيرات الدموية بغطاء بلاستيكي وتأكد من بقاء عمود السائل محصورا في الحجرة المسطحة.
- انقل عدة يرقات مع حجم صغير من وسط E3 إلى شعيرات دموية بحجم 100 ميكرولتر.
- يرع يرقات من الشعيرات الدموية بلطف في أعلى الجزء المسطح.
ملاحظة: حرص على الحفاظ على استمرارية الحل. لا ينبغي أن تكون هناك فقاعات هواء في الجزء المسطح أو بالقرب من الجزء المسطح. - أزل السائل الزائد من القسم الأنبوبي الخارجي للشعيرات الدموية مع الحفاظ على اتصال مستمر للسائل داخل الحجرة المسطحة.
- كرر الخطوات 3.1.5–3.1.7 حتى يتم تحميل 20–30 يرقة في الشعيرات الدموية المسطحة.
- أزل السائل المتبقي من الأقسام الأنبوبية في الشعيرات الدموية.
- أدخل الشعيرات الدموية في مطياف الرنين البارامغناطيسي للإلكترونات ووضع العينة في مركز الرنان.
- اضبط معاملات الاستحواذ في برنامج المطيافية كما يلي: الحقل المركزي = 335 mT; عرض المسح = 10 متيتر؛ سعة التضمين = 500 ميكروت؛ قدرة الميكروويف = 1.6 ميغاواط؛ عدد عمليات المسح = 32؛ زمن المسح = 11 ثانية؛ ثابت الزمن = 0.
- اكتساب طيف الرنين البارامغناطيسي للإلكترون.
- أزل الشعيرات الدموية من الرنان وأطلق اليرقات إلى وسط E3 طازج في طبق بتري.
ملاحظة: تجنب إدخال فقاعات الهواء أثناء تحميل العينة، لأن الانقطاعات في عمود السائل قد تقلل من قابلية تكرار الإشارة. إذا لم يكن الكشف متعدد التوافقيات متاحا، قم بتقليل سعة التضمين وتحسين معلمات الاكتساب لتعظيم شدة الإشارة دون تشويه طيفي.
- اكتشاف جذور الميلانين في يرقات سمك الزرد المجمدت
- قم بإذابة عينة مجمدة تحتوي على 10 يرقات من أسماك الزرد المدمجة في درجة حرارة الغرفة لمدة 5–10 دقائق.
- أضف 100 ميكرولتر من وسط E3 إلى العينة المذابة.
- انقل اليرقات مع الوسط إلى شعيرات دموية بحجم 100 ميكرولتر.
- أزل السائل الزائد من الشعيرات الدموية حتى تشغل العينة فقط حجم الرنان النشط (حوالي 1 سم طولا).
- أغلق الشعيرات الدموية بمركب ختم.
- أدخل الشعيرات الدموية في مطياف الرنين البارامغناطيسي للإلكترونات ووضع العينة في مركز الرنان.
- اضبط معاملات الاستحواذ في برنامج المطيافية كما يلي: الحقل المركزي = 335 mT; عرض المسح = 10 متيتر؛ سعة التضمين = 500 ميكروت؛ قدرة الميكروويف = 1.6 ميغاواط؛ عدد عمليات المسح = 32؛ زمن المسح = 11 ثانية؛ ثابت الزمن = 0.
- اكتساب وحفظ طيف الرنين البارامغناطيسي للإلكترون.
ملاحظة: تأكد من بقاء الحافة العلوية للعينة تحت الحافة العلوية للرنان لتجنب تشويه الإشارة. إذا لم يكن الكشف متعدد التوافقيات متاحا، قلل سعة التعديل وحسن قدرة الميكروويف لتعظيم شدة الإشارة دون تشويه طيفي.
- استخراج بيانات الرنين البارامغناطيسي الإلكتروني من برمجيات المحلل متعدد التوافقيات والمعالجة اللاحقة للأطياف
- افتح طيف الرنين البارامغناطيسي الإلكتروني المسجل في برنامج التحليل متعدد التوافقيات.
- تفعيل معالجة الإشارة ذات القناة المزدوجة باختيار استخدام قناتين.
- اضبط عدد التوافقيات المعالجة إلى 30.
- اضبط معامل الطور/الدرجة الميكروويفية حتى يتم الحصول على مكونات الامتصاص والتشتت المتماثلة.
- قم بضبط معامل الطور/الدرج للتعديل حتى تعرض القناة 1 إشارة امتصاص نقية وتعرض القناة 2 إشارة تشتت نقية.
- قم بضبط معامل سعة التعديل/G حتى يتم الحصول على أضيق خط طيفي غير مشوه.
- اضبط معامل Low Pass/Hz لتقليل الضوضاء عالية التردد مع الحفاظ على شكل الخط الطيفي.
- اختر علامة التبويب كتم الضوضاء واضغط على تفعيل كتم الضوضاء. قم بضبط معامل التنعيم ومعاملات تحسين الخط الضيق حتى يتم تحسين نسبة الإشارة إلى الضوضاء دون حدوث تشويه مرئي للخط الطيفي.
- اختر تبويب Artifacts وفعل تصحيح الخارج وتصحيح عرض النطاق الترددي.
- حفظ الأطياف بصيغة تستخدمها برامج تحليل البيانات لمزيد من التحليل.
- حساب شدة الإشارة مزدوجة التكامل باستخدام التكامل العددي في برامج تحليل البيانات المناسبة.
ملاحظة: عند العمل مع الرنانات عالية التردد، يحسن تصحيح عرض النطاق الترددي إعادة بناء المكونات التوافقية الأعلى. تمكن إعادة البناء متعددة التوافقيات من استعادة الأطياف غير المشوهة من البيانات الخام المعدلة بشكل مفرط وتحسن نسبة الإشارة إلى الضوضاء في العينات البيولوجية منخفضة الشدة.
النتائج
يتم عرض نظرة عامة تخطيطية لسير العمل التجريبي في الشكل 1. تم جمع أجنة سمك الزرد، وزرعها بخلايا الميلانوما B16F10، وحضنتها تحت ظروف مضبوطة، ومراقبتها بواسطة مجهر المجال الساطع أو الفلورة قبل تحليل الرنين المغناطيسي المغناطيسي الإلكتروني في النطاق X. تم تحميل الأجنة الحية لاحقا في حامل شعيرات دموية مسطحة/عينة لقياس الرنين المغناطيسي للإلكترونات في الكائن الكامل، مما أتاح الكشف غير الجراحي عن الإشارات الجذرية المرتبطة بالميلانين. بعد اكتساب الرنين البارامغناطيسي للإلكترون، تم إطلاق الأجنة في وسط E3 طازج، مما سمح بقياسات طولية في نفس العينات البيولوجية.
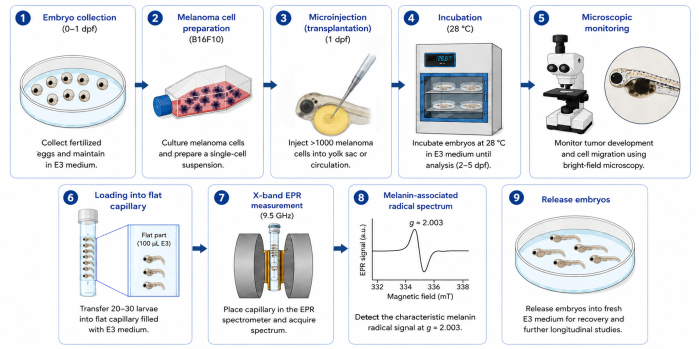
الشكل 1: نظرة رسومية على سير العمل التجريبي لمراقبة الجذور المرتبطة بالميلانين في الغرباء باستخدام مطيافية الرنين البارامغناطيسي الإلكتروني (EPR) في نطاق X-band لمراقبة الجذور المرتبطة بالميلانين. يتم جمع أجنة سمك الزرد، وزرعها بخلايا الميلانوما، وحضانها، ومراقبتها مجهريا قبل تحميلها في شعيرات دموية مسطحة مخصصة لقياس EPR للكائن الكامل. بعد اكتشاف إشارة الراديكال المرتبطة بالميلانين المميزة (g ≈ 2.003)، يتم إطلاق اليرقات لإجراء قياسات متابعة طولية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
للتحقق من خصوصية الطريقة، أجريت قياسات على أجنة من النوع البري (WT) وأجنة سمك الزرد الألبينو. تبدأ أجنة WT في تطوير تصبغ مرئي عند حوالي 27 حصان قوة (حصان قوة إم) وبالمثل، تظهر أطياف الرنين البارامغناطيسي للإلكترونات المكتسبة من أجنة WT إشارة خط واحد مميزة مركزة عند g ≈ 2.003، متوافقة مع جذور السيميكينون المشتقة من الإيوميلانين (مثل DHI/DHICA). على النقيض من ذلك، الأجنة الألبينو، التي تفتقر إلى تخليق الميلانين الوظيفي، لا تظهر أي إشارة رنين مغناطيسية إلكترونية قابلة للكشف في نفس المنطقة الطيفية حتى بعد 5 أيام من الإخصاب (DPF). يؤكد هذا أن الإشارة المرصودة تنشأ تحديدا من جذور الميلانين وتمثل انتقائية طريقة التحقق من السيطرة السلبية (الشكل 2).
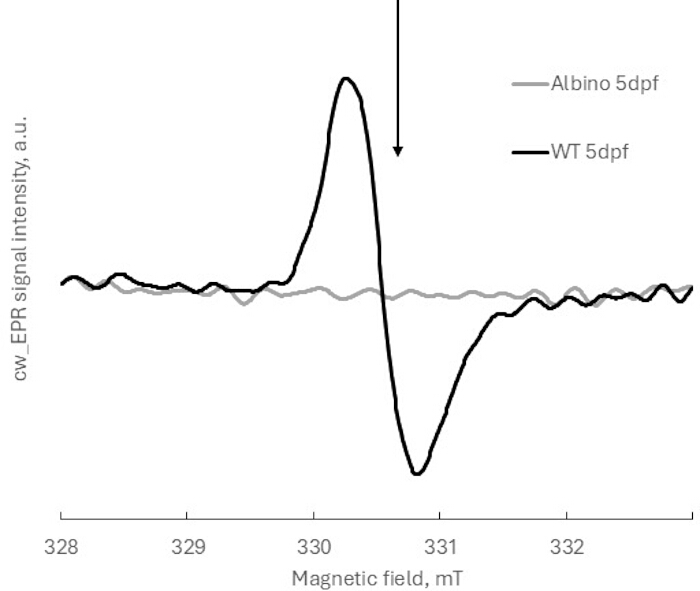
الشكل 2: أطياف الرنين البارامغناطيسي للإلكترونات في نطاق X الممثل لأجنة سمك الزرد البري (WT) وسمك الزرد الألبينو عند 5dpf. يشير السهم إلى موقع الرنين (g ≈ 2.003) لإشارة الراديكالية المرتبطة بالميلانين من أجنة سمك الزرد WT 5dpff. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
تمكن هذه الطريقة من المراقبة الكمية لتكوين جذور الميلانين أثناء التطور. مع تقدم التصبغ، يلاحظ زيادة واضحة في شدة إشارة الرنين البارامغناطيسي للإلكترون. تظهر مقارنة أجنة WT من 2 dpf إلى 5 dpf زيادة كبيرة في إشارة الرنين البارامغناطيسي الإلكترونية مزدوجة التكامل التي تم تطبيعها لكل جنين. تم التطبيع عن طريق قسمة شدة إشارة الرنين البارامغناطيسي للإلكترون الخام على عدد الأجنة في العينة قبل حساب التكامل المزدوج (الشكل 3A).
تم إجراء التحليل الإحصائي باستخدام اختبار كروسكال–واليس تلاه اختبار المقارنات المتعددة لدن. أظهر التحليل عبر ستة نسخ بيولوجية مستقلة (كل منها يتكون من 7–10 أجنة) فروقا ذات دلالة إحصائية في إشارة الرنين البارامغناطيسي للإلكترون بين مراحل النمو (p < 0.05)، مؤكدا حساسية الطريقة.
التكامل المزدوج لأطياف الرنين البارامغناطيسي للإلكترون يتناسب مع عدد الدورانات الإلكترونية غير المتوافقة. لذا، يشير الارتفاع إلى زيادة في عدد الجذور المرتبطة بالميلانين أثناء التطور. ومن المهم أن هذا الارتفاع يعكس على الأرجح تغيرات في توازن الميلانين الأكسدة المرتبط بتكوين الميلانين التدريجي، وليس فقط تراكم الصبغة.
تم تقييم قابلية تكرار البروتوكول بشكل إضافي من خلال مقارنة أطياف الرنين المغناطيسي المغناطيسي الإلكتروني الممثلة التي تم الحصول عليها من عينات تحتوي على أعداد مختلفة من الأجنة (7 مقابل 10) في نفس المرحلة التطورية (5 DPF). كما هو متوقع، أظهرت الأطياف الخام اختلافات في سعة الإشارة تتناسب مع حجم العينة (الشكل 3B). بعد تطبيع كل طيف لعدد الأجنة في كل عينة، تداخلت الأطياف تقريبا بالكامل (الشكل 3C)، وبقيت التغيرات بين الدفعات أقل من 10٪. تسلط هذه النتائج الضوء على أهمية تطبيع كل جنين وتؤكد متانة الطريقة في الدراسات المقارنة.
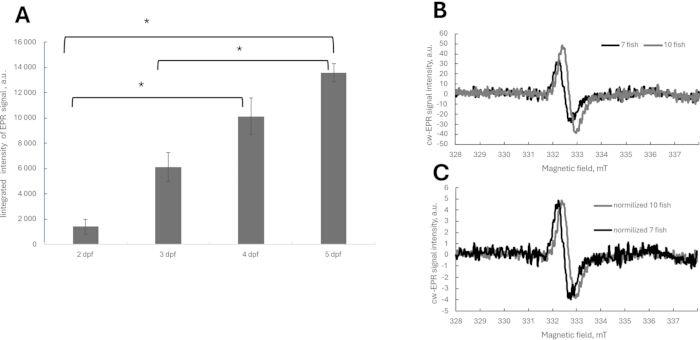
الشكل 3: المراقبة الكمية لديناميكيات الجذور المرتبطة بالميلانين التطورية وتطبيع أطياف الرنين البارامغناطيسي للإلكترون. (أ) إشارة رنين مغناطيسية إلكترونية مزدوجة النطاق X المتكاملة تم الحصول عليها من أجنة سمك الزرد البري (WT) بعد 2 و3 و4 و5 أيام من الإخصاب (DPF). تم تطبيع شدة الإشارة إلى عدد الأجنة لكل عينة. تمثل البيانات متوسط ± SD لست نسخ بيولوجية مستقلة، كل منها يتكون من 7 إلى 10 أجنة. فروق ذات دلالة إحصائية - *p < 0.05. (ب) أطياف الرنين البارامغناطيسية الإلكترونية الخام الممثلة التي تم الحصول عليها من أجنة 5 dpf WT باستخدام عينات تحتوي على 7 و10 أجنة. تزداد سعة الإشارة بشكل متناسب مع عدد الأجنة في العينة. (ج) نفس أطياف الرنين البارامغناطيسي للإلكترونات المعروضة في اللوحة B بعد التطبيع، أي أن شدات الطيف الخام تقسم على عدد الأجنة في الشعيرات الدموية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
لتقييم ما إذا كان البروتوكول يعتمد على الشعيرات الدموية المسطحة المخصصة المستخدمة لقياسات سمك الزرد الحي ، تم إجراء اكتشاف الجذور المرتبطة بالميلانين باستخدام كل من الشعيرات الدموية المسطحة المخصصة وشعرية دموية متوفرة تجاريا قياسية لتحليل خارج الجسم الحي . أظهرت أطياف الرنين البارامغناطيسي الإلكترونية الممثلة التي تم الحصول عليها باستخدام كلا حاملي العينة شكل خط وموقع رنين متقاربين للغاية (الشكل 4A)، مما يشير إلى أن الكشف الموثوق عن الجذور المرتبطة بالميلانين لا يقتصر على تصميم الشعيرات الدموية المخصص. كانت الإشارات من الشعيرات الدموية المسطحة، بعد التطبيع لكل جنين، أقل بمرتين من تلك التي أعيد حسابها من الشعيرات الدموية القياسية.
لتقييم مرونة التعامل مع العينة بشكل أكبر، تم قياس أجنة سمك الزرد مباشرة بعد الجمع وبعد التجميد، تلاها تحليل خارج الجسم باستخدام الشعيرات الدموية القياسية. لم تلاحظ فروق ذات دلالة إحصائية بين العينات الطازجة والمجمدة عبر ستة نسخ بيولوجية مستقلة (الشكل 4B). تظهر هذه النتائج أن البروتوكول يمكن تكييفه لحاملات عينات الرنين البارامغناطيسي للإلكترون المتاحة بشكل شائع ويدعم التحليل المؤجل خارج الجسم، مما يزيد بشكل كبير من سهولة الوصول والمرونة وقابلية التكرار للطريقة عبر المختبرات التي تستخدم مطياف الرنين البارامغناطيسي الإلكتروني المختلفة.
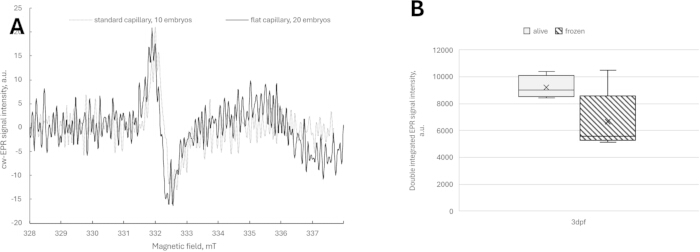
الشكل 4: توافق البروتوكول. (أ) أطياف الرنين البارامغناطيسي للإلكترونات الخام المقاسة بالشعيرات الدموية القياسية والمسطحة لسمك الزرد 2dpf WT. (ب) مقارنة نفس النسخ البيولوجية (3 dpf وزن سمكة الزرد) التي تم قياسها حية ومجمدة في الشعيرات الدموية القياسية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
لتحديد ما إذا كانت إشارة الرنين البارامغناطيسي الإلكترونية المكتشفة يمكن نسبها مباشرة إلى جذور الميلانين المشتقة من الميلانوما، تم استخدام أجنة سمك الزرد الألبينو كخلفية خالية من الميلانين وحقنها بخلايا ميلانوما B16F10. أجريت قياسات الرنين البارامغناطيسي الإلكتروني بعد 4 أيام من الإخصاب (DPF) تحت نفس ظروف الاستحواذ المستخدمة للأجنة البرية. كما هو متوقع، أظهرت الأجنة المهمقة غير المحقونة عدم وجود إشارة رنين مغناطيسي إلكتروني قابلة للكشف في المنطقة الطيفية الخاصة بالميلانين. ومن المهم أنه لم يلاحظ أي إشارة رنين بارامغناطيسية مرتبطة بالميلانين الإلكتروني في الأجنة الألبينو التي تم حقنها من خلايا B16F10 (الشكل 5A)، رغم تأكيد نجاح زرع الخلايا بواسطة المجهر الساطع (الشكل 5B).
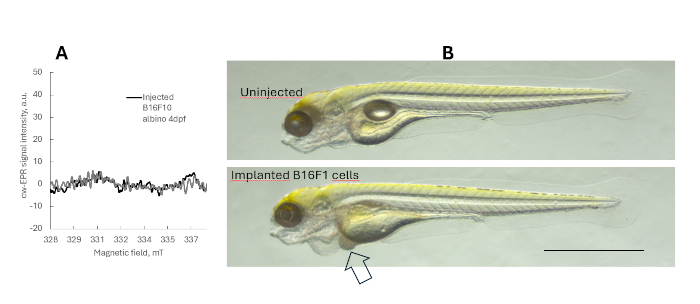
الشكل 5: تقييم الكشف المباشر عن الجذور المرتبطة بالميلانين المستخرج من الميلانوما في أطراف الزرد B16F10 في أسماك الزرد الألبينو. (أ) إشارة الرنين البارامغناطيسي للإلكترونات المرتبطة بالميلانين في قياسات زينوغرافت 4df ألبينو وألبينو B16F10 التي تقاس باستخدام مطياف الرنين البارامغناطيسي للإلكترونات في نطاق X. تم استخدام ثلاث نسخ بيولوجية من 10 أجنة لكل منها. (ب) صورة مجال ساطع لطعم ألبينو وألبينو 4 DPF مع B16F10 بعد ثلاثة أيام من زرع خلايا السرطان. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
تشير هذه النتائج إلى أنه، في ظل الظروف التجريبية الحالية، فإن عدد خلايا الميلانوما المحقونة أقل من عتبة الكشف المباشر للرنين البارامغناطيسي للإلكترونات في نطاق X. لذلك، فإن الإشارة المرتبطة بالميلانين التي تكتشف في قياسات الكائن الحي بالكامل تعكس بشكل أساسي التغيرات العالمية في حالة الأكسدة الاختزالية للميلانين في جنين/يرقة سمك الزرد، بدلا من إشارة خاصة بالميلانوما تنشأ حصريا من الزرع الغريب.
في تجارب الزينوغرافت، كانت كفاءة زرع ونمو خلايا الميلانوما تعتمد بشكل كبير على موقع الحقن. أدى الحقن في الدورة الدموية إلى تطور أورام أكثر انتظاما وسمح باكتشاف إشارات الرنين البارامغناطيسية الإلكترونية الموثوقة المرتبطة بخلايا الميلانوما. على النقيض من ذلك، أدى الحقن في كيس الصفار إلى ضعف تطور الأجنة وضعف نمو الورم، مما أدى إلى إشارات ضعيفة أو غير متسقة. لذلك، يوصى بحقن مجرى الدم للحصول على نتائج قوية وقابلة للتفسير (الشكل 6).
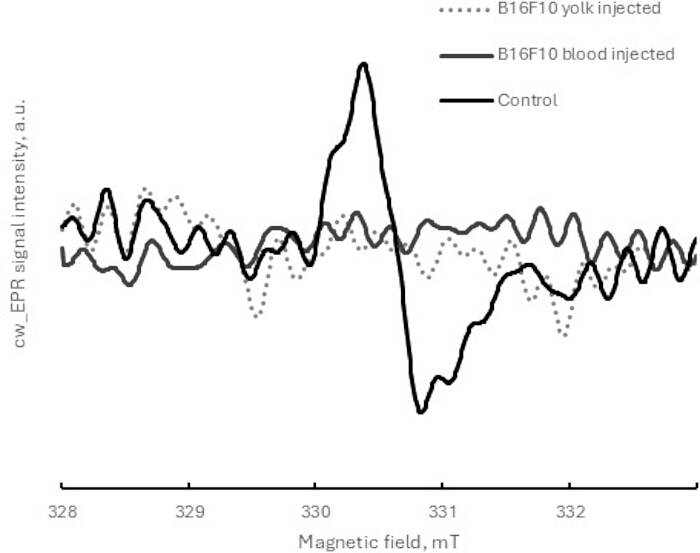
الشكل 6: تأثير موقع حقن خلايا الميلانوما على جنين سمك الزرد 2 dpf وتطور الزينوغرافات المقاس برنين بارامغناطيسي إلكترونات في نطاق X. أطياف الرنين البارامغناطيسية الإلكترونية الممثلة من أجنة سمك الزرد المحقونة بخلايا ميلانوما B16F10 في كيس الصفار أو الدورة الدموية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
لإثبات مدى تطبيق الطريقة في نماذج الميلانوما، قارنا إشارة الرنين البارامغناطيسي للإلكترونات التي تم الحصول عليها من أجنة سمك الزرد البري (WT) وأجنة WT التي تم حقنها بخلايا ميلانوما B16F10 عبر نقاط زمنية مختلفة من التطور.
في أجنة WT، تزداد إشارة الرنين البارامغناطيسي للإلكترون تدريجيا مع مرور الوقت، مما يعكس التراكم الطبيعي لليوميلانين أثناء التطور. على النقيض من ذلك، أظهرت الأجنة التي تحمل عناصر B16F10 تغيرات في ديناميكيات الإشارة، مع إشارة رنين بارامغناطيسية إلكترونية معدلة مقارنة ب WT في النقاط الزمنية المقابلة (الشكل 7). من المرجح أن تعكس هذه الاختلافات تعديل الميلانين الناتج عن الورم لتكون المضيف وحالات الأكسدة الاختزال الجهازية، وليس الكشف المباشر عن جذور الميلانين المشتقة من الميلانوما فقط. نظرا لأن خلايا B16F10 تنتج في الغالب الإيوميلانين، لم يتم اكتشاف إشارة الفيوملانين.
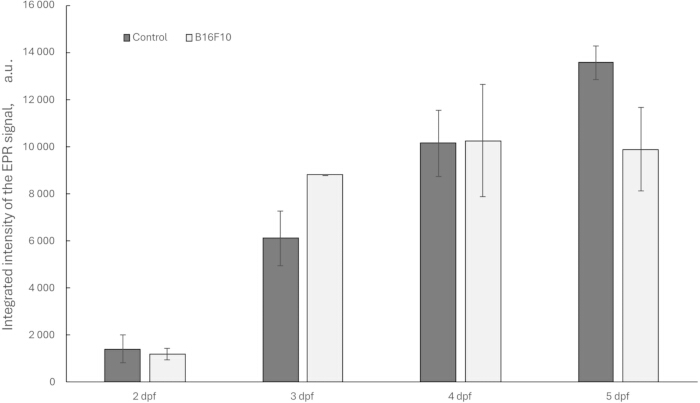
الشكل 7: مقارنة تمثيلية لديناميكيات إشارات EPR الكائنية الكاملة في أجنة أسماك الزرد الحاملة ل WT وWT B16F10 الضابطة. إشارة الرنين البارامغناطيسي للإلكترونات ذات النطاق X المتكاملة المزدوجة تم الحصول عليها من أجنة أسماك الزرد البرية (WT) وWT B16F10 من الزينوغرافات الساحرة بعد 2 و3 و4 و5 أيام من الإخصاب (DPF). تم تطبيع شدة الإشارة إلى عدد الأجنة لكل عينة. تمثل البيانات متوسط ± SD لست نسخ بيولوجية مستقلة (للسيطرة) وثلاثة لأطراف B16F10 الغريبة، كل منها يتكون من 7–10 أجنة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
بشكل عام، يشير نجاح تنفيذ هذا البروتوكول ب: (1) اكتشاف إشارة رنين مغناطيسي إلكترون أحادية الخط عند g ≈ 2 في الأجنة المصبوغة، (2) غياب الإشارة في الضوابط المهققة، (3) زيادة شدة الإشارة مع مرحلة النمو، و(4) قابلية التكرار عبر النسخ البيولوجية بعد التطبيع.
المناقشة
تقدم هذه الدراسة بروتوكولا قويا وحساسا للكشف في الجسم الحي عن الجذور المرتبطة بالميلانين في أجنة سمك الزرد باستخدام مطيافية الرنين البارامغناطيسي الإلكتروني في نطاق X. تمكن هذه الطريقة من المراقبة غير الجراحية والخالية من العلامات لتغيرات الأكسدة المحازة المرتبطة بالميلانين أثناء الميلانين الفسيولوجي، وتطور الميلانوما الزينوغرافت، والتدخل الدوائي. من خلال دمج الحساسية العالية لتحليل الرنين المغناطيسي البارامغناطيسي للإلكترونات في نطاق X مع منصة زينوغرافت سمك الزرد، يوسع هذا النهج القدرات التحليلية لنماذج ميلانوما سمك الزرد الحالية إلى ما هو أبعد من التصوير المورفولوجي التقليدي نحو التوصيف الكيميائي المباشر. على عكس التصوير القائم على الفلورة، الذي يوفر بشكل أساسي معلومات هيكلية ومكانية، يكتشف مطيافية الرنين البارامغناطيسي الإلكتروني مباشرة جذور سيميكينون بارامغناطيسية مستقرة، مما يوفر رؤى وظيفية مكملة لبيولوجيا أكسدة الميلانين.
يتمتع سير العمل المعروض بتطبيق واسع في أبحاث التصبغ والميلانوما. تشمل التطبيقات المحتملة تقييم علاجات مكافحة الميلانوما، والتحقيق في التغيرات الناتجة عن الأدوية في توازن الأكسدة والاختزال، وتقييم المركبات المعدلة للميلانوجين مثل عوامل إزالة التصبغ أو الاستجابة للأشعة فوق البنفسجية، وتحليل التفاعلات بين الورم والمضيف في الجسم الحي. علاوة على ذلك، قد يوفر التكامل مع التصوير الفلوري وغيره من اختبارات الظاهرة منصة متعددة الوسائط تجمع بين المعلومات المكانية والشكلية والكيميائية الحيوية، مما يعزز القيمة التنبؤية لنماذج سمك الزرد في البحث ما قبل السريري والتطوير العلاجي.
تعد عدة معلمات تجريبية حاسمة للحصول على نتائج موثوقة. في تجارب الزينوغرافت، وفر الحقن في الدورة الدموية تركيبا أكثر اتساقا وقياسات رنين مغناطيسي إلكتروني قابلة للتكرار مقارنة بحقن كيس الصفار، وهو ما يتوافق مع الدراسات السابقة29,30. يلعب اختيار درجة حرارة الحضانة دورا مهما. بينما قد تحافظ أطراف سمك الزرد عادة على 32 درجة مئوية لصالح حركية خلايا الثدييات31، تبدو خطوط الميلانوما B16F10 في الفئران المستخدمة في هذه الدراسة عدوانية بما يكفي لإظهار قدرات تكاثرية وهجرة قوية عند 28 درجة مئوية. نظرا لأن بيئة بدرجة حرارة 32 درجة مئوية قد تسرع بشكل كبير من تطور سمك الزرد الوحشي—مما قد يؤدي إلى سلوك تغذية مستقل قبل اليوم الخامس بعد الإخصاب—فإن الحفاظ على اليرقات عند 28 درجة مئوية سيضمن بقاء الكائنات الحية ضمن مراحل النمو غير المحمية32. وبالتالي، قد يسمح هذا الاختيار بدرجة الحرارة بمراقبة ناجحة لتقدم الورم وانتشاره مع الالتزام بلوائح رفاهية الحيوان التي تحمي اليرقات بمجرد وصولها إلى مرحلة التغذية المستقلة. نقطة حاسمة أخرى هي أن التطبيع الدقيق لعدد الأجنة وترتيب التطور المتسق ضروريان لتقليل التغيرات البيولوجية. قد تنتج إشارات ضعيفة أو غير متسقة عن نقص التصبغ، أو انخفاض عبء الورم، أو وضع العينة غير الأمثل داخل الرنان، أو عدم اكتمال الحشو الشعري. في مثل هذه الحالات، قد يحسن زيادة عدد الأجنة في العينة، وتحسين كفاءة الزراعة، والتحقق من وضع العينة ضمن حجم الرنان النشط من اكتشاف الإشارة. يتطلب الأمر أعدادا أكبر من الأجنة لقياسات الحياة في الشعيرات الدموية المسطحة بسبب فقدان العازل وانخفاض عامل التعبئة المرتبط بقياسات الكائن الحي الكامل في العينات البيولوجية المائية. ومع ذلك، يمكن استخدام هذه الطريقة مع الشعيرات الدموية القياسية خارج الجسم الحي. تظهر هذه النتائج أن البروتوكول متوافق مع تكوينات مطيافية الرنين البارامغناطيسي الإلكترونية في نطاق X المتوفرة بشكل شائع، ويدعم التحليل المتأخر خارج الجسم، مما يزيد من سهولة الوصول وقابلية التكرار عبر المختبرات باستخدام أجهزة مختلفة.
على الرغم من مزاياها، إلا أن الطريقة لها عدة قيود. اعتبار بيولوجي مهم هو أن إشارة الرنين البارامغناطيسي الإلكترونية المكتشفة تعكس الجزء النشط بالأكسدة والاختزاز في بوليمر الميلانين بدلا من محتوى الصبغة الكلي وحده 15,21,33. وبناء عليه، يجب تفسير التغيرات في شدة إشارة الرنين البارامغناطيسي للإلكترونات على أنها تغيرات في توازن الأكسدة الاختزالية المرتبطة بالميلانين بدلا من كونها بديلا مباشرا لوفرة الميلانين. أظهرت تجارب الزينوغرافت المهقنة أيضا أنه في ظل الظروف التجريبية الحالية، ظل عدد خلايا الميلانوما المحقونة أقل من عتبة الكشف المباشر لتحليل الرنين البارامغناطيسي للإلكترونات في نطاق X. لذلك، فإن إشارة الكائن الكائن الكامل التي تكتشف في يرقات الزينوغرافت تعكس بشكل أساسي التغيرات العالمية في حالة الأكسدة المرتبط بالميلانين الناتج عن تفاعلات الورم والمضيف، وليس الإشارة الخاصة بالميلانوما التي تنشأ حصريا من الزينوغرافت. ومن المهم أن البيئة الدقيقة لسمك الزرد تدخل تدرجات ديناميكية للأكسجين، وتفاعلات أيضية، وظروف إجهاد تأكسدي قد تعدل أيضا تجمعات جذور الميلانين في الجسم الحي 19,20. في تطبيقات الزينوغرافت، تقتصر الطريقة حاليا على نماذج الميلانوما عالية التصبغ، حيث يتطلب تركيز الميلانين الكافي للكشف الموثوق عن الإشارات. قد لا تنتج الأورام الميلانوسية أو ضعيفة التصبغ إشارات قابلة للكشف27. بالإضافة إلى ذلك، تنتج خطوط خلايا الميلانوما المستخدمة في هذه الدراسة (B16F10) بشكل رئيسي الإيوميلانين، مما ينتج عنه خط رنين بارامغناطيسي إلكتروني واحد. في النماذج التي تساهم فيها الفيوميلانين بشكل كبير، قد يحدث تداخل طيفي13. في مثل هذه الحالات، سيكون من الضروري المحاكاة الطيفية المتقدمة وفك الالتفاف للتمييز بين إشارات الإيوميلانين والفيوملانين.
ومع ذلك، يوفر سير العمل المعروض إمكانيات واسعة لدراسة بيولوجيا الميلانوما، والتعديل الناتج عن الأدوية لتكون الميلانوسا، والإجهاد التأكسدي، والتفاعلات بين الورم والمضيف في الجسم الحي. قد يعزز دمج طيف الرنين المغناطيسي الإلكتروني مع التصوير الفلوري، والمراسلين الجينيين، وغيرها من الفحوصات الظاهرية القيمة التنبؤية لنماذج سمك الزرد في أبحاث الميلانوما قبل السريرية وتطوير العلاج.
الإفصاحات
يعمل المؤلف ميكواي بارانوفسكي في شركة نوفيليت، التي تصنع مكونات من مقياس الطيف المستخدم في هذه الدراسة (محلل متعدد التوافقيات). المؤلفون الباقون يعلنون عدم وجود مصالح متنافسة.
شكر وتقدير
تم تنفيذ مشروع "شعيرات شعرية جديدة وطريقة لتحديد جذر الميلانين للاستخدام في الدراسات قبل السريرية للأدوية المحتملة للميلانوما في نموذج الأجنة دانيو ريريو " FENG.02.07-IP.05-0059/23 ضمن برنامج FENG POC التابع لمؤسسة العلوم البولندية، بتمويل مشترك من الاتحاد الأوروبي ضمن الصناديق الأوروبية للاقتصاد الذكي 2021–2027 (FENG). وقد دعم الاتحاد الأوروبي هذا البحث ضمن برنامج التشغيل الذكي للنمو (رقم المشروع POIR.01.02.00-00-0077/18).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1.5 mL أو 0.5 mL أنبوب إيبيندورف | Eppendorf | 0030120086, 0030121023 | لنقل يرقة سمك الزرد إلى الشعرية |
| ماصات باستور 3 مل قابلة للتصرف | Medlab Products | 76-1303-2 | لفرز الأجنة واليرقة ونقلها |
| مقياس طيف EPR من نوع X-band على المنضدة MiniScope MS200 | Magnettech | Bruker.com | تسجيل أطياف EPR |
| كلوريد الكالسيوم ثنائي الهيدرات | Chempur | 363-118748706 | لتحضير وسط E3 |
| شرائح عد الخلايا (مثل EVE أو EVE PLUS) | Nanoentek Inc | NC2200445 | لعداد الخلايا |
| CellTracker Green | Thermo Fisher | C2925 | صبغة تتبع الخلايا الفلورية، لتسمية الخلايا |
| CM-DiI | Thermo Fisher | C7000 | صبغة تتبع الخلايا الفلورية، لتسمية الخلايا |
| حاضنة CO2 ICO240med | Memmert | N/A | للحفاظ على الخلايا، مضبطة على 37°C، 5% CO2، ≥95% رطوبة |
| عداد الخلايا الآلي Countess II | Invitrogen | AMQAX1000 | لعد الخلايا و كثافة الخلايا |
| صناديق الحفظ بالتبريد CryoKING | Biologix | BGX-ID81 | لتخزين أسماك الزرد المزروعة |
| وسط الحفظ بالتبريد CM-1 | Cytion | #800150 | لتجميد الخلايا السرطانية |
| وسط دولبيكو المعدّل للخلايا النسريّة (DMEM)، عالي الجلوكوز، غلوتاميين، بدون بيروفات الصوديوم | Gibco | #11965-092 | للحفاظ على زراعة الخلايا |
| وسط E3 | داخلي | N/A | لحفظ أجنة/يرقة أسماك الزرد، تم تحضيرها وفقاً لـ Cold Spring Harb Protoc 2011، doi: 10.1101/pdb.rec066449 |
| حاضنة البيض | Incubato | 10130024 | لحضانة جنين/يرقة أسماك الزرد، مضبطة على 28–32°C |
| برنامج eSpect+ | Novilet | https://novilet.eu/products/espect/ | لتحليل متعدد التوافق |
| المصل البقري الجنيني (FBS) | Gibco | A5256701 | مكمل لـ DMEM |
| ملقط ناعم، مطلي بالسيراميك، Dumont #5، 11 سم | Dumont SA | 11252-50 | لإزالة قشرة أجنة أسماك الزرد |
| الشعيرات الزجاجية المسطحة المصممة لأسماك الزرد (رقم التطبيق: 21 736) | N/A | N/A | لقياسات EPR لأجنة أسماك الزرد |
| إبر القسطرة الزجاجية | Harvard Apparatus | GB100-10 | خالية من اللب، للحقن الدقيق |
| ماصات دم (ماصات BRAND القابل للتصرف BLAUBRAND)، الحجم 50 و 100 ميكرولتر | BRAND | 41121500 | لقياسات EPR أو لنقل يرقة أسماك الزرد إلى شعرية مسطحة |
| كلوريد المغنيسيوم سداسي الهيدرات | Chempur | 363-116120500 | لتحضير وسط E3 |
| نظام الحقن الدقيق مع أداة التحكم الدقيقة FemtoJet | Eppendorf | EPE5252000021 | لتحميل الخلايا في الإبر الدقيقة |
| نصائح Microloader لتحميل الإبرة | Eppendorf | #5242956003 | لنظام الحقن الدقيق |
| خط خلية سرطان الجلد الفأري B16-F1 | Cytion | CLS-400122 | للطعوم الغريبة |
| خط خلية سرطان الجلد الفأري B16-F10 | Cytion | 305157 | للطعوم الغريبة |
| محلل متعدد التوافق eSpect+ | Novilet | https://novilet.eu/products/espect/ | لمقياس EPR، لزيادة الحساسية |
| محلول البنسلين-الستربتومايسين | Sigma | P0781-50ml | اختياري، مكمل لـ DMEM لزراعة الخلايا |
| طبق بيتري، 55 ملم | Medlab Products | 51-0056-0A-NX | لحضانة بيض أسماك الزرد، الأجنة واليرقة |
| محلول فوسفات مخفف (PBS)، خالٍ من الكالسيوم والمغنيسيوم | Sigma | D8537-500ml | لشطف الخلايا |
| كلوريد البوتاسيوم | Chempur | 363-117397402 | لتحضير وسط E3 |
| مجموعة إغلاق ماصات الدم - Critoseal | Noxygen | NOX-A.3-VPC | لقياسات EPR لأجنة أسماك الزرد |
| كلوريد الصوديوم | Chempur | 363-117941206 | لتحضير وسط E3 |
| حاوية تخزين النيتروجين السائل الثابت | Biobase | YDS-47-127-FS | لحفظ ثقافات الخلايا |
| مجهر ستيريوسكوبي | Optatech | SK Series | لتقييم تطور أجنة أسماك الزرد |
| أنبوب فالكون معقم سعة 15 مل | SPL Life Sciences | S50015 | لحصاد الخلايا (الطرد المركزي) |
| أطباق بيتري معقمة 90 نانومتر | Googlab Scientific | GP508 | لزراعة الخلايا |
| أنبوب التجميد الجليدي المعقم: CryoPure Tube 1.0 مل | Sarstedt | 72.377 | لتجميد الخلايا |
| ماصات باستر معقمة للزراعة النسيجية (Corning Falcon Serological Pipettes)، الحجم 5، 10، 25 مل | Corning | 357543, 356551, 356535 | لزراعة الخلايا |
| Tricaine (MS-222) | Sigma | 886-86-2 | محلول طازج 4 غ/لتر، لتخدير أسماك الزرد وإيثارها |
| TrypLE Express (1×) أو Trypsin-EDTA (0.05%) | Gibco | #12605-010 | لفصل الخلايا أثناء الزراعة |
| حمام مائي Precision GP 05 | Thermo Scientific | N/A | مضبط على 37 °C، لتسخين وسط الخلايا |
| أجنة أسماك الزرد | ZIRC | https://zebrafish.org/documents/fees.php |
المراجع
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً