يُعد تحليل اللطخة المناعية لبروتين LC3 طريقة شائعة الاستخدام لمراقبة عملية الالتهام الذاتي، إلا أنها تتطلب تحسيناً دقيقاً. يصف هذا البروتوكول نهجاً قوياً للكشف عن LC3-II وتقديره كمياً في خلايا سرطان البنكرياس المشتقة من نموذج KPC، بما في ذلك الاعتبارات التقنية الرئيسية وسير عمل موحد للتحليل القياسي للكثافة الضوئية باستخدام برنامج Fiji.
مقالة منهجية
تحليل "ويسترن بلوت" لبروتين السلسلة الخفيفة 3 المرتبط بالأنابيب الدقيقة لمراقبة ديناميكيات الجسيمات البلعمية الذاتية في خلايا سرطان البنكرياس المشتقة من الفئران
في هذه المقالة
ملخص
الملخص
تلعب عملية البالع الذاتي (Autophagy) دوراً معقداً في سرطان الغدد القنوية البنكرياسية (PDAC)، حيث تساهم في تطور الورم، والتكيف مع الإجهاد، ومقاومة العلاج. لذا، يعد التقييم الدقيق لديناميكيات الجسيمات البالعة ذاتياً أمراً ضرورياً لدراسات بيولوجيا السرطان. ومن بين الطرق المتاحة، يُستخدم تحليل اللطخة المناعية للبروتين المرتبط بالأنيبيبات الدقيقة ذو السلسلة الخفيفة 3 (LC3) على نطاق واسع لمراقبة ديناميكيات الجسيمات البالعة ذاتياً من خلال التمييز بين الأشكال الموجودة في العصارة الخلوية (LC3-I) والأشكال المرتبطة بالدهون والجسيمات البالعة ذاتياً (LC3-II). ومع ذلك، فإن الوزن الجزيئي المنخفض لبروتين LC3 والفرق الضئيل في الحركية الكهربائية بين هذه الأشكال المتماثلة يفرض تحديات تقنية تتطلب تحسيناً دقيقاً. نقدّم هنا بروتوكولاً قابلاً للتكرار للتحليل شبه الكمي لمستويات LC3-II بواسطة لطخة ويسترن في خلايا سرطان البنكرياس الفأرية المشتقة من نموذج KPC. تتضمن هذه الطريقة ظروفاً محسّنة لتحلل الخلايا، والترحيل الكهربائي، ونقل البروتين، والكشف القائم على الأجسام المضادة لضمان الفصل والكشف الموثوقين لأشكال LC3 المتماثلة. بالإضافة إلى ذلك، تم توفير سير عمل قياسي للتحليل الكثافي لنطاقات LC3-II باستخدام برنامج Fiji (ImageJ). وقد تم إثبات حساسية هذه الطريقة من خلال الكشف عن زيادة مستويات LC3-II في ظل ظروف تحفيز البالع الذاتي (العلاج بالجيمسيتابين) وضعف التدفق البالعي (إسكات جين VMP1). كما تم فحص المعايير التقنية الحرجة التي تؤثر على تفسير البيانات، بما في ذلك تركيب محلول التحلل وخصوصية الجسم المضاد، جنباً إلى جنب مع الأخطاء التجريبية الشائعة. وعلى الرغم من أن تحليل اللطخة المناعية لـ LC3 وحده لا يكفي لتحديد التدفق البالعي بشكل كامل، إلا أنه عند دمجه مع فحوصات تكميلية فإنه يوفر نهجاً قوياً ومتاحاً لمراقبة نشاط البالع الذاتي. ويمكن تكييف هذا البروتوكول مع سياقات تجريبية أخرى، مما يسهل الدراسات الميكانيكية للبالع الذاتي في نماذج السرطان.
المقدمة
يُعد البلعمة الذاتية الكبرى (المشار إليها فيما يلي باسم البلعمة الذاتية) مساراً تحللياً منظماً تقوم الخلايا من خلاله بتفكيك المواد السيتوبلازمية، بما في ذلك البروتينات والعضيات غير الوظيفية. وتتمثل السمة المميزة للبلعمة الذاتية في تكوين بنية ذات غشاء مزدوج تُعرف باسم الجسيم البلعمي الذاتي، والذي يقوم بعزل الشحنات الخلوية ثم ينقلها لاحقاً إلى الجسيمات الحالة لتحليلها1,2,3. وفي الخلايا الطبيعية، تساهم البلعمة الذاتية في التجديد المنضبط للبروتينات والعضيات، مما يحد من الإجهاد التأكسدي ويقلل من خطر تطور الأورام. ومع ذلك، يمكن تسخير هذه العملية في الخلايا السرطانية لدعم البقاء في ظل ظروف الطلب الأيضي المرتفع، ونقص العناصر الغذائية، ونقص الأكسجة. ومن خلال تسهيل التكيف مع البيئة المجهرية المعادية، تساهم البلعمة الذاتية أيضاً في مقاومة العلاج الكيميائي، وذلك جزئياً عن طريق التخفيف من التلف الخلوي الناجم عن العلاج4,5.
يُصنف سرطان البنكرياس كثالث سبب رئيسي للوفيات المرتبطة بالسرطان في الولايات المتحدة. ويتم تصنيف ما يقرب من 90% من سرطانات البنكرياس على أنها سرطان غدي في القنوات البنكرياسية (PDAC). وعلى عكس العديد من الأورام الخبيثة الأخرى، التي أدى فيها الكشف المبكر والتقدم العلاجي إلى تحسين معدلات بقاء المرضى على قيد الحياة، يتم تشخيص سرطان PDAC في مرحلة متقدمة في أكثر من 80% من الحالات. وتؤدي هذه الصورة المرضية المتأخرة، مقترنة بالبيولوجيا الورمية العدوانية والمقاومة الملحوظة للعلاج، إلى وصول معدل البقاء الإجمالي لمدة 5 سنوات إلى حوالي 11%6.
يعد نموذج فأر KPC، الذي يعتمد على تفعيل Kras المسرطن بشكل محدد في البنكرياس والحذف الشرطي لـ Trp53 بواسطة إنزيم Cre recombinase، أحد أكثر النماذج المعدلة وراثياً استخداماً لسرطان القنوات البنكرياسية الغدية. تطور هذه الفئران أوراماً تلقائية تشبه إلى حد كبير المرض البشري، حيث تتطور من التنشؤ الورمي داخل الظهارة البنكرياسية (PanIN) إلى سرطان غازٍ. والأهم من ذلك، أن هذا النموذج يحاكي السمات الرئيسية لسرطان البنكرياس، بما في ذلك السدى التنسجي الكثيف والبيئة المجهرية الورمية المثبطة للمناعة. وتوفر الخلايا الورمية المعزولة من فئران KPC (الخلايا المشتقة من KPC) نظاماً مكملاً in vitro يحتفظ بالعديد من الخصائص الجينية والمظهرية للأورام الأصلية، مما يسمح بإجراء الدراسات الميكانيكية والتقييم المنضبط للاستجابات العلاجية7,8.
يعد VMP1 بروتيناً أساسياً مرتبطاً بالبلعمة الذاتية، حيث يبدأ عملية البلعمة الذاتية من خلال تفاعله مع Beclin-1 واستقطاب معقد PI3KC39,10. وإلى جانب مرحلة البدء، يشارك VMP1 في مراحل متعددة من البلعمة الذاتية، بما في ذلك تكوين الجسيم البلعمي الذاتي10، وإغلاقه11، والعمليات الانتقائية مثل بلعمة الميتوكوندريا12 وبلعمة الزيموجين13. ويظل VMP1 مشاركاً طوال تدفق البلعمة الذاتية وقد يؤدي وظائف إضافية كبروتين مبعثر للفوسفوليبيدات14. وفي البنكرياس، يكون تعبير VMP1 منخفضاً عادةً، ولكنه يُحفز بقوة في ظروف الإجهاد، بما في ذلك التهاب البنكرياس والتحول الورمي، حيث يعزز البلعمة الذاتية في المسارات التي تلي إشارات KRAS الطافرة15,16. ويحدث فرط في تعبير VMP1 في سرطان البنكرياس17، وقد أظهرت نماذج الفئران التجريبية أن البلعمة الذاتية المعتمدة على VMP1 تتعاون مع KRAS لتعزيز بدء الورم وتكوين PanIN18. علاوة على ذلك، يساهم VMP1 في مقاومة العلاج الكيميائي لأن زيادة تنظيمه بواسطة عوامل مثل الجيمسيتابين19 تحفز البلعمة الذاتية19 وتدعم بقاء الخلايا الورمية17، مما يسلط الضوء على دوره المعزز لتكوين الأورام15.
تتميز الأجسام البلعمية الذاتية بوجود البروتين المرتبط بالبلعمة الذاتية، وهو البروتين المرتبط بالأنيبيبات الدقيقة من السلسلة الخفيفة 3 (LC3)20. في الظروف الأساسية، يتواجد LC3 بشكل أساسي في شكل قابل للذوبان (LC3-I) يتوزع في جميع أنحاء السيتوبلازم والنواة. وعند تنشيط البلعمة الذاتية، يخضع LC3 لعملية ليبيدتة من خلال الاقتران بالفوسفاتيديل إيثانولامين، مما ينتج الشكل المرتبط بالغشاء LC3-II1,21. ورغم أن LC3-II يمتلك وزناً جزيئياً أعلى من LC3-I بسبب هذا التعديل، إلا أنه يهاجر بسرعة أكبر أثناء الفصل الكهربائي للهلام باستخدام SDS-PAGE، ويرجع ذلك على الأرجح إلى زيادة كرهه للماء. وبناءً على ذلك، فإن تحول LC3-I إلى LC3-II يعكس عملية الليبيدتة وليس المعالجة البروتينية، حيث يتم الكشف عادةً عن LC3-I عند حوالي 16 kDa وLC3-II عند حوالي 14 kDa. ونظراً لأن مستويات LC3-II ترتبط بوفرة الأجسام البلعمية الذاتية، فإن استخدام لطخة المناعية لـ LC3 شائع على نطاق واسع لمراقبة نشاط البلعمة الذاتية22. لذا، يعد التقييم الدقيق لديناميكيات LC3 ضرورياً لتفسير النتائج التجريبية المرتبطة بالبلعمة الذاتية.
تتناول هذه الدراسة تفاصيل التوحيد القياسي والتحسين التقني لبروتوكول كلاسيكي لطبعة مناعية لبروتين LC3 في خط خلوي لسرطان البنكرياس مشتق من KPC. يكتسب التحسين أهمية خاصة لأن LC3 بروتين ذو وزن جزيئي منخفض، كما أن شكلي LC3-I و LC3-II يختلفان بمقدار ~2 kDa فقط في الحركة الكهربائية، فضلاً عن كون LC3-II نوعاً مرتبطاً بالدهون21,22. وبناءً على ذلك، يمكن أن تؤدي الاختلافات الإجرائية الطفيفة إلىما يؤثر سلباً على الكشف عن LC3 ويؤدي إلى نتائج غير مثالية. بالإضافة إلى ذلك، يمثل الأصل النوعي للعينات اعتباراً هاماً لتحقيق التفاعل المناعي الأمثل. ويتميز البروتوكول المُحسن بحساسية كافية للكشف عن زيادة مستويات LC3-II بعد العلاج بالعامل الكيميائي gemcitabine وبعد تثبيط VMP1، وهي ظروف معروفة بتحفيز الالتهام الذاتي وإعاقة التدفق الالتهامي على التوالي. وأخيراً، تم تسليط الضوء على اثنين من العثرات التقنية المحتملة لتوضيح تأثيرها على جودة البيانات وتفسير النتائج. يوضح الشكل 1 نظرة عامة على سير العمل التجريبي هذا.
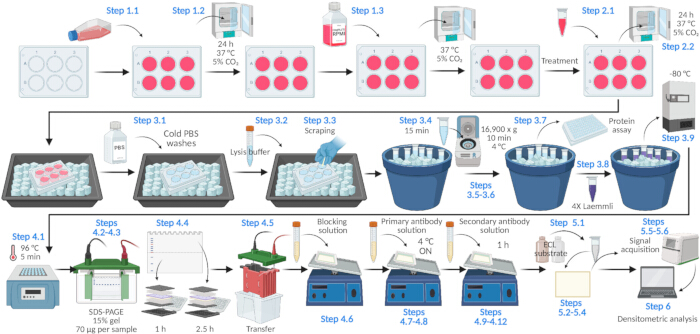
الشكل 1: تمثيل تخطيطي لبروتوكول اللطخة المناعية لبروتين LC3 في الخلايا المشتقة من KPC. نظرة عامة تخطيطية للبروتوكول المستخدم للكشف عن مستويات LC3-II وقياسها كمياً عن طريق اللطخة المناعية. يتم استنبات خلايا سرطان البنكرياس المشتقة من KPC وإخضاعها لمعالجات تجريبية، يتبع ذلك تحلل الخلايا، وتقدير كمية البروتين، والترحيل الكهربائي باستخدام SDS–PAGE، ونقل البروتينات إلى الغشاء، والكشف عن LC3 باستخدام الأجسام المضادة، والحصول على الإشارة الكيميائية المضيئة، والتحليل الكثافي لنطاقات LC3-II مع معايرتها وفقاً لضابط تحميل. يبرز مخطط سير العمل الخطوات الإجرائية الرئيسية والمراحل الحرجة المطلوبة للتقييم الموثوق لديناميكيات LC3. تم التصميم بواسطة BioRender.com. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
البروتوكول
أُجريت جميع الإجراءات التي تضمنت حيوانات وفقاً للإرشادات المؤسسية وبموافقة لجنة الرعاية والاستخدام المؤسسي للحيوان (IACUC) في مستشفى ماساتشوستس العام بموجب البروتوكول رقم 2019N000111. أما خط خلايا سرطان البنكرياس المشتق من KPC المستخدم في هذه الدراسة فقد تم تأسيسه مسبقاً في مختبر Mostoslavsky بموجب هذا البروتوكول المعتمد. وتتوفر قائمة الكواشف والمواد الكيميائية ومعلومات المعدات في جدول المواد.
1. تحضير الخلايا
- ازرع خلايا ورم البنكرياس المشتقة من KrasG12D; Trp53f/+; p48-Cre من ممر منخفض (المشار إليها فيما يلي باسم KPC) في طبق مكون من 6 آبار باستخدام وسط معهد روزويل بارك التذكاري (RPMI 1640) الذي يحتوي على 10% مصل جنين البقر، و100 U/mL بنسلين، و100 µg/mL ستربتومايسين. اضبط كثافة الزرع للحصول على درجة تلاقي تتراوح بين 70% و90% في يوم التحلل.
ملاحظة: أدت كثافة زرع قدرها 3.5 × 10⁵ خلية لكل بئر إلى تلاقي بنسبة ~80% بعد 72 ساعة. ونظراً لأن النمو قد يختلف بين المختبرات ونماذج KPC، فحدد كثافة الزرع المثلى تجريبياً قبل إجراء التجربة.
ملاحظة: لإنتاج خطوط خلوية مستقرة ذات تثبيط لـ VMP1، قم بإنتاج جسيمات فيروسية لينتيفيروسية عن طريق التعداء المشترك لخلايا HEK293T باستخدام بلازميدات التغليف والناقل اللينتيفيروسي المقابل باستخدام بولي إيثيلين إيمين (PEI). اجمع السوائل الطافية للفيروسات اللينتيفيروسية بعد 72 ساعة من التعداء، ثم قم بالطرد المركزي عند 300 × g لمدة 10 دقائق عند 4 °C لإزالة الحطام الخلوي، ورشحها باستخدام مرشح حقنة بمسامية 0.45 µm. أخضع خلايا KPC لجولة واحدة من نقل الجينات باستخدام السوائل الفيروسية الطافية التي تم جمعها. اختر الخلايا التي تم نقل جيناتها بشكل مستقر عن طريق المعالجة بـ 2.5 µg/mL بورومايسين (تخفيف 1:4,000 من محلول مخزون بتركيز 10 mg/mL) لمدة 72 ساعة. - ازرع الخلايا عند 37 °C في حاضنة رطبة تحتوي على 5% ثاني أكسيد الكربون (CO₂).
- استبدل الوسط بوسط جديد واستمر في التحضين تحت نفس الظروف.
2. المعالجة بـ 20 µM من الجيمسيتابين
- قم بتحضير محلول gemcitabine بتركيز 10 mM في وسط RPMI قبل يوم واحد من عملية التحلل. عالج كل بئر بإضافة 4 µL من المحلول بتركيز 10 mM للوصول إلى تركيز نهائي قدره 20 µM.
- حضن الخلايا لمدة 24 h عند درجة حرارة 37 °C في حضّانة رطبة تحتوي على 5% من ثاني أكسيد الكربون (CO₂).
3. نواتج تحلل الخلايا
- ضع الطبق على الثلج واغسله ثلاث مرات بمحلول ملحي منظم بالفوسفات البارد (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄, and 2 mM KH₂PO₄).
- أضف 80 µL من منظم التحلل (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100, and 0.1% SDS) المدعم بمثبطات البروتياز.
ملاحظة: إذا لوحظت مستويات تلاقي خلوية مختلفة بين الآبار، قم بتعديل حجم منظم التحلل للحصول على تركيزات بروتينية متقاربة. وكإرشاد عام، استخدم ~10 µL من منظم التحلل لكل 10% من التلاقي الخلوي (على سبيل المثال، 70 µL لتلاقي بنسبة 70% و 90 µL لتلاقي بنسبة 90%). - باستخدام الطرف العريض (القريب) لرأس ماصة P200، اكشط سطح كل بئر بالكامل لإزالة الخلايا وجمعها في منظم التحلل.
- اجمع المادة المتحللة في أنبوب طرد مركزي دقيق واحفظها على الثلج لمدة 15 min.
- قم بطرد العينات مركزياً عند 16,900 × g عند 4 °C لمدة 10 min.
- انقل السائل الطافي إلى أنبوب طرد مركزي دقيق نظيف.
- اسحب عينة كمية لتقدير كمية البروتين واحفظها على الثلج حتى التحليل.
ملاحظة: لتقدير كمية البروتين، خفف 2.5 µL من المادة المتحللة في 7.5 µL من منظم التحلل واخلطها مع 200 µL من كاشف حمض البيسينكونينيك. كما يمكن استخدام طرق بديلة لتقدير كمية البروتين. - أضف منظم عينات Laemmli بتركيز 4× (250 mM Tris-HCl, pH 6.8, 8% SDS, 40% glycerol, 0.04% bromophenol blue, and 20% β-mercaptoethanol) إلى المواد المتحللة واخلطها جيداً. بالنسبة لـ 77.5 µL من المادة المتحللة، أضف 25.8 µL من منظم عينات Laemmli.
- خزن العينات عند −80 °C.
ملاحظة: يمكن إيقاف البروتوكول عند هذه الخطوة. يمكن تخزين العينات عند −80 °C لمدة تصل إلى أسبوعين قبل إجراء SDS–PAGE.
4. الفصل الكهربائي للهلام بكبريتات دوديسيل الصوديوم (SDS–PAGE) وبصمة ويسترن (Western blot)
- سخن العينات عند 96 °C لمدة 5 دقائق.
- تحميل 70 µg من كل عينة على هلام SDS–PAGE بتركيز 15% (بسماكة 1.5 مم)، وإجراء الرحلان الكهربائي عند 90 فولت حتى يدخل جبهة الصبغة في هلام الفصل. استخدم هلام فصل بولي أكريلاميد مصبوب ذاتياً بتركيز 15% يحتوي على 15% أكريلاميد/ببس-أكريلاميد، و375 ملي مولار Tris-HCl (بدرجة حموضة 8.8)، و0.1% SDS.
- ارفع الجهد إلى 120 فولت واستمر في عملية الرحلان الكهربائي حتى تصل جبهة الصبغة إلى أسفل الهلام أو تتجاوزه. أوقف التشغيل قبل أن يتجاوز مؤشر 10 كيلو دالتون في سلم الأوزان الجزيئية حافة الهلام.
- اقطع الهلام عند 25 كيلو دالتون تقريباً لفصل الجزأين العلوي والسفلي.
- انقل البروتينات إلى 0.2 µm غشاء PVDF منشط مسبقاً بالميثانول في محلول نقل منظم (25 مللي مولار Tris base، و192 مللي مولار جلايسين، و20% [حجم/حجم] ميثانول) عند 200 مللي أمبير لمدة ساعة واحدة للجزء السفلي من الهلام (<25 كيلو دالتون) و2.5 ساعة للجزء العلوي من الهلام (>25 كيلو دالتون).
- يتم حجب الغشاء لمدة ساعة واحدة في محلول الحجب مع الرج الخفيف.
- قم بتحضير محلول بتركيز 1:1,000 من الجسم المضاد الأولي المضاد لـ LC3 في محلول حجب يحتوي على 0.1% من Tween-20.
ملاحظة: استُخدم الجسم المضاد الأولي المضاد لـ LC3 بتخفيف 1:1,000، واستُخدم الجسم المضاد لضبط التحميل المضاد للأكتين بتخفيف 1:4,000. - تُحضن الغشاء طوال الليل عند 4 °C باستخدام جسم مضاد أولي ضد LC3 تحت رجّ خفيف.
- اغسل الغشاء أربع مرات لمدة 5 دقائق باستخدام محلول TBS-T (0.1% Tween-20 في TBS؛ و20 ملي مولار Tris-HCl، برقم هيدروجيني 7.6، و150 ملي مولار NaCl).
- قم بتحضير محلول بتركيز 1:2,000 من جسم مضاد ثانوي مضاد للأرنب مقترن ببيروكسيداز الفجل الحار في محلول حجب.
- حضّن الغشاء مع الجسم المضاد الثانوي لمدة ساعة واحدة في درجة حرارة الغرفة مع الرج اللطيف.
- اغسل الغشاء أربع مرات لمدة 5 دقائق باستخدام TBS-T.
- اغسل الغشاء مرتين باستخدام محلول TBS.
5. الكشف بالتألق الكيميائي
- قم بتحضير مادة الركيزة ذات التألق الكيميائي المعزز ثنائية المكونات عن طريق خلط أحجام متساوية من الكاشف A (محلول اللومينول/المعزز) والكاشف B (محلول البيروكسيد) مباشرة قبل الاستخدام.
- جفف السوائل الزائدة من الغشاء برفق باستخدام منديل مختبري.
- ضع الغشاء في صندوق معتم.
- أضف محلول التألق الكيميائي المعزز إلى الغشاء، ثم أغلق الصندوق واتركه للحضن لمدة 5 min.
- اترك المحلول الزائد يتصرف من الغشاء، ثم ضع الغشاء في نظام التصوير للكشف عن الإشارة.
- التقط الصور وفقاً لتعليمات الشركة المصنعة لنظام التصوير.
6. التحليل الكثافتي باستخدام برنامج Fiji
- قم بسحب ملف الصورة وإفلاته داخل نافذة Fiji لفتحه.
- حول الصورة إلى تدرج رمادي بـ 8 بت (الصورة → النوع → (8-بت).
- إذا لزم الأمر، قم بتدوير الصورة لمحاذاة النطاقات أفقياً (الصورة → تحويل → تدوير.
- قم بتفعيل "المعاينة" (Preview) واضبط الشبكة على عدد مناسب من الخطوط (على سبيل المثال، 20 خطاً).
- اضبط زاوية الدوران حتى يتم محاذاة النطاقات بشكل صحيح.
- استخدم أداة التحديد المستطيلة لتحديد منطقة الاهتمام (ROI) حول المسار الأول، بحيث تشمل فقط الحزمة المقابلة لـ LC3-II.
ملاحظة: يجب ألا يكون عرض المنطقة المختارة أكثر من ضعف ارتفاعها. استخدم نفس أبعاد منطقة الاهتمام (ROI) لجميع النطاقات المشمولة في التحليل. - تحديد التحليل → الهلامات → حدد المسار الأول.
- انقل منطقة الاهتمام (ROI) ذاتها إلى المسار التالي وقم بوضعها حول النطاق المقابل.
- تحديد التحليل → الهلامات → اختر المسار التالي.
- تكرار الخطوات 6.6 و 6.7 حتى يتم اختيار المسار الأخير.
- إنشاء ملفات تعريف الكثافة (تحليل → الهلامات → ممرات المخطط.
- استخدم أداة الخط المستقيم لتحديد خط الأساس لكل قمة، وقم بقياس كثافة النطاق باستخدام أداة العصا السحرية.
- قم بتطبيع القيم وفقاً لضابط التحميل.
النتائج
يصف هذا البروتوكول تقنية لطخة ويسترن (Western blotting) لمراقبة ديناميكيات LC3 في خط خلوي لسرطان البنكرياس مشتق من KPC تحت ظروف تجريبية مختلفة. ينتج البروتوكول صوراً ذات تألق كيميائي لـ LC3 وضابط تحميل (loading control). في هذه الدراسة، تم استخدام actin كضابط للتحميل.
يتم عرض تطبيقين ممثلين للبروتوكول. أولاً، تمت مقارنة خلايا KPC الضابطة بخلايا KPC المعالجة بعقار gemcitabine. يعد gemcitabine عاملاً علاجياً كيميائياً أُبلغ سابقاً عن قدرته على تحفيز عملية الالتهام الذاتي في خلايا سرطان البنكرياس19. يوضح الشكل 2A صورة ممثلة لتحليل اللطخة المناعية لبروتين LC3 مع استخدام actin كضابط تحميل. تظهر النتائج الكمية التي تم الحصول عليها من خلال التحليل الكثافي في برنامج Fiji في الشكل 2B. تم تطبيع مستويات LC3-II بالنسبة لبروتين actin. لوحظت زيادة معنوية بنسبة 59% في مستويات LC3-II في الخلايا المعالجة بعقار gemcitabine، وهو ما يتوافق مع تحفيز الالتهام الذاتي.
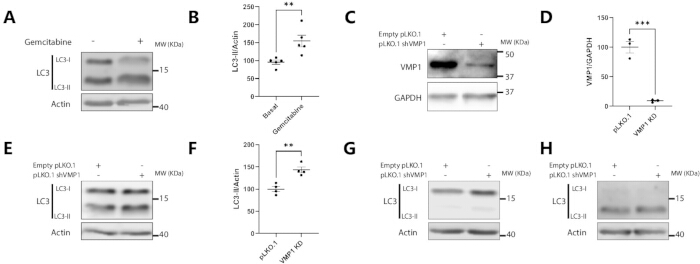
الشكل 2: تحليل اللطخة المناعية لبروتين LC3 في خلايا سرطان البنكرياس المشتقة من KPC: (A-B) تأثيرات gemcitabine، (C-F) تقليل تعبير VMP1، و(G-H) ظروف تقنية غير مثالية. (A–B) مستويات LC3 في الظروف الأساسية وعند المعالجة بـ gemcitabine. عولجت خلايا سرطان البنكرياس المشتقة من KPC بـ 20 µM من gemcitabine لمدة 24 h أو تُرِكت دون معالجة. تم وسم نواتج تحلل الخلايا مناعياً لـ LC3 وactin كضابط تحميل. (A) تظهر صور تمثيلية للطخة المناعية لـ LC3 وactin. (B) يوضح الرسم البياني القياس الكمي لكثافة حزمة LC3-II المُطبعة وفقاً لـ actin. البيانات معروضة كمتوسط ± SEM. **p < 0.01 باختبار t-test غير المقترن لـ Student. n = 4 لكل حالة. (C–D) التحقق من تثبيط VMP1 بوساطة shRNA. تم تحليل نواتج تحلل خلايا تعبر باستمرار إما عن بلازميد pLKO.1 فارغ (pLKO.1) أو بلازميد pLKO.1 يشفر shRNA يستهدف تسلسل VMP1 في الفئران (VMP1 KD). (C) صورة تمثيلية للوطخة الغربية لـ VMP1، مع استخدام GAPDH كضابط تحميل. (D) القياس الكمي لمستويات تعبير VMP1 يظهر انخفاضاً بنسبة ~90% في خلايا VMP1 KD. البيانات معروضة كمتوسط ± SEM. ***p < 0.001 باختبار t-test غير المقترن لـ Student. n=3 لكل حالة. (E–F) تأثير تقليل تعبير VMP1 على تراكم LC3-II. تم تحليل نواتج تحلل خلايا سرطان البنكرياس المشتقة من KPC التي تعبر باستمرار عن بلازميدات pLKO.1 فارغة أو shVMP1 وتم وسمها مناعياً لـ LC3 وactin كضابط تحميل. (E) تظهر صور تمثيلية للطخة المناعية لـ LC3 وactin. (F) يوضح الرسم البياني القياس الكمي لكثافة حزمة LC3-II المُطبعة وفقاً لـ actin. البيانات معروضة كمتوسط ± SEM. **p < 0.01 باختبار t-test غير المقترن لـ Student. n = 5 لكل حالة. (G-H). تجارب غير مثالية. تم تحليل نواتج تحلل خلايا سرطان البنكرياس المشتقة من KPC التي تعبر باستمرار إما عن pLKO.1 فارغ أو بلازميد shVMP1 وتم وسمها مناعياً لـ LC3 وactin كضابط تحميل. (G) صور تمثيلية للطخة المناعية لـ LC3 وactin تم الحصول عليها من نواتج تحلل حُضّرت باستخدام محلول تحلل بتركيز منخفض من المنظف. (H) صور تمثيلية للطخة المناعية لـ LC3 وactin، حيث تم الكشف عن LC3 باستخدام جسم مضاد أولي لا يضمن التفاعلية مع الفئران. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
أُجريت تجربة ثانية باستخدام خلايا سرطان البنكرياس المشتقة من KPC والتي تعبر بشكل مستمر إما عن بلازميد pLKO.1 فارغ (pLKO.1) أو بلازميد pLKO.1 يشفر shRNA يستهدف تسلسل VMP1 في الفأر (VMP1 KD). تم التحقق أولاً من نجاح عملية التثبيط لبروتين VMP1. يوضح الشكل 2C لطخة مناعية ممثلة لـ VMP1 مع استخدام GAPDH كضابط تحميل، ويحدد الشكل 2D انخفاضاً بنسبة 90% في تعبير VMP1 في خلايا VMP1 KD. بعد ذلك، تم تقييم مستويات LC3-II في هذه الخلايا. وكان من المتوقع حدوث زيادة في تراكم LC3-II لأن VMP1 ضروري لتكوين الجسيمات البلعمية الذاتية. وعلى الرغم من أن تثبيط VMP1 لا يمنع تحويل LC3-I إلى LC3-II، إلا أنه يعيق تكوين الجسيمات البلعمية الذاتية وما يلي ذلك من تحلل للمواد المحملة، مما يؤدي إلى تراكم LC3-II11,15. تظهر لطخات مناعية ممثلة لـ LC3 والأكتين في الشكل 2E، بينما يظهر القياس الكمي لنسبة LC3-II/actin في الشكل 2F. وقد لوحظت زيادة معنوية بنسبة 43% في مستويات LC3-II في خلايا VMP1 KD مقارنة بضوابط pLKO.1.
تُظهر هذه النتائج أن البروتوكول يتيح الكشف والتقدير الكمي الموثوق لمستويات LC3-II في نموذج خلايا سرطان البنكرياس المشتق من KPC. ومع ذلك، فإن الانحرافات الطفيفة عن البروتوكول قد تؤدي إلى نتائج غير مثالية.
بما أن LC3-II هو الشكل المرتبط بالدهون من LC3، فإن الاستخلاص الفعال يتطلب محلول تحلل يحتوي على تركيز كافٍ من المنظفات. يوضح الشكل 2G لطخات مناعية ممثلة لـ LC3 والأكتين تم الحصول عليها من نفس النموذج التجريبي الموصوف في الشكل 2E–F (pLKO.1 مقابل VMP1 KD)، ولكن باستخدام محلول تحلل بتركيز منخفض من المنظفات (50 mM Tris-HCl، pH 7.4، و250 mM NaCl، و25 mM NaF، و2 mM EDTA، و0.1% Triton X-100). وعلى الرغم من أن إشارة الأكتين ظلت مقبولة، إلا أن إشارة LC3 كانت دون المستوى الأمثل؛ حيث كانت حزمة LC3-I فقط مرئية بوضوح، بينما كانت حزمة LC3-II بالكاد قابلة للكشف ومنخفضة بشكل ملحوظ مقارنة بـ LC3-I.
هناك متغير مهم آخر في عملية اللطخة المناعية لبروتين LC3 وهو اختيار الجسم المضاد الأولي. تظهر اللطخات المناعية الموضحة في الأشكال 2أ، 2B، 2E، 2F، و 2G تَمَّ إنتاجها باستخدام جسم مضاد أولي حقَّق كشفاً قوياً لبروتين LC3 في هذا النظام التجريبي. وفي المقابل، الشكل 2H يُظهر تحليل لطخة مناعية لبروتين LC3 تم إنتاجه باستخدام جسم مضاد أولي مختلف، والذي أعطى نتائج دون المستوى الأمثل. في ظل هذه الظروف، كان بروتين LC3-I بالكاد قابلاً للكشف، وكانت إشارة LC3-II أضعف بكثير من تلك التي تم الحصول عليها باستخدام الجسم المضاد المستخدم في التجارب السابقة.
المناقشة
تصف هذه المقالة التحسين التقني والتوحيد القياسي لبروتوكول كلاسيكي لطبعة مناعية لبروتين LC3 في خلايا سرطان البنكرياس المشتقة من KPC. ونظراً للدور المعترف به بشكل متزايد للبلعمة الذاتية والبروتينات المرتبطة بها في تطور سرطان البنكرياس وتفاقمه23، يوفر سير العمل الموحد هذا نهجاً موثوقاً لمراقبة ديناميكيات LC3. ويمكن تطبيق هذا البروتوكول لتقييم تجمع الجسيمات البلعمية الذاتية تحت مجموعة متنوعة من الظروف التجريبية، بما في ذلك العلاج الكيميائي، والإجهاد التأكسدي، ونقص الأكسجة، وإجهاد الشبكة الإندوبلازمية، والتعديلات الجينية مثل الإفراط في تعبير الجينات، أو إسكات الجينات، أو تعطيل الجينات، أو الطفرات. وبالإضافة إلى تقييم ديناميكيات LC3، يمكن تكييف البروتوكول لاستقصاء التفاعلات المباشرة أو غير المباشرة بين LC3 والبروتينات المستهدفة؛ فعلى سبيل المثال، يمكن إجراء الترسيب المناعي لبروتين مستهدف متبوعاً بالكشف عن LC3 في المستخلص باستخدام سير العمل هذا. علاوة على ذلك، يمكن تطبيق الطبعة المناعية لـ LC3 في تحليل الحويصلات خارج الخلوية في سياق البلعمة الذاتية الإفرازية، وهو مجال ناشئ تزداد أهميته في سرطان القنوات البنكرياسية24,25.
كما هو موضح في الشكل 2G–H، يجب التحكم بدقة في عدة خطوات حرجة لأن الانحرافات الطفيفة قد تؤدي إلى نتائج غير مثالية. ومن أهم الاعتبارات تكوين محلول التحلل (lysis buffer). يتطلب الاستخلاص الفعال لـ LC3-II محلولاً يحتوي على تركيز عالٍ نسبياً من المنظفات، مثل RIPA buffer أو تركيبة مشابهة. أما المحاليل ذات المحتوى المنخفض من المنظفات، والتي تُستخدم عادةً في بروتوكولات الترسيب المناعي للحفاظ على التفاعلات بين البروتينات، فقد تفشل في إذابة LC3-II بشكل كافٍ. وفي ظل هذه الظروف، قد يظل LC3-I قابلاً للكشف، بينما يصبح الكشف عن LC3-II صعباً أو مستحيلاً، مما يؤثر سلباً على تفسير البيانات.
ثمة عامل حاسم آخر وهو اختيار جسم مضاد أولي تم التحقق من كفاءته في النظام التجريبي قيد الدراسة. وقد اقتصر التقييم التقني المقدم هنا على مقارنة بين جسمين مضادين من نفس الشركة المصنعة، ولا يشكل ذلك تحققاً شاملاً عبر مستنسخات أو موردين متعددين. ومع ذلك، توضح النتائج كيف يمكن أن يختلف أداء الأجسام المضادة بشكل كبير بين الأنظمة التجريبية. ورغم أنه لا يمكن استخلاص استنتاجات نهائية فيما يتعلق بالخصوصية النوعية من هذه المقارنة المحدودة، فإن الأداء غير المثالي للجسم المضاد البديل الذي تم تقييمه في هذا النموذج يسلط الضوء على أهمية التحقق التجريبي بدلاً من الاعتماد على التفاعل المتبادل المتوقع. ووفقاً لورقة البيانات الخاصة بالشركة المصنعة، فإن هذا الجسم المضاد معتمد للعينات البشرية، بينما يُتوقع تفاعله مع الفئران بناءً على تماثل التسلسل. وبينما لوحظ كشف ضعيف لـ LC3 في خلايا الفئران (الشكل 2H)، فإن الجسم المضاد نفسه فشل سابقاً في توليد إشارات قابلة للكشف في أنسجة بنكرياس الجرذ وخلايا AR42J المشتقة من الجرذ (البيانات غير معروضة). وتؤكد هذه الملاحظات أهمية التحقق من أداء الجسم المضاد ضمن النموذج البيولوجي المحدد الذي يتم استقصاؤه.
تشمل المعلمات الإضافية التي تتطلب تحسيناً تكوين الهلام وظروف الرحلان الكهربائي. يوفر هلام الفصل بتركيز 15% فصلاً مناسباً لبروتينات LC3-I وLC3-II عند إيقاف عملية الرحلان الكهربائي في الفترة ما بين وصول جبهة الصبغة إلى أسفل الهلام وقبل خروج مؤشر الوزن الجزيئي 10 kDa من الهلام. وفي المقابل، فإن الهلامات ذات التركيز المنخفض، مثل هلامات 7%، لا توفر دقة فصل كافية. وتُعد ظروف النقل على الغشاء ذات أهمية متساوية نظراً لأن LC3 بروتين ذو وزن جزيئي منخفض. فقد يؤدي عدم كفاية وقت النقل أو شدة التيار إلى تقليل كفاءة النقل، بينما قد يؤدي الإفراط في وقت النقل أو شدة التيار إلى فقدان البروتين عبر الغشاء. كما قد يؤدي استخدام أغشية ذات أحجام مسام أكبر إلى زيادة هذه المخاطر.
قد تكون عدة تعديلات على البروتوكول مقبولة. يمكن استخدام كاشطات الخلايا التجارية بدلاً من رؤوس ماصات P200 أثناء جمع الخلايا. كما يمكن معالجة العينات فوراً بعد التحلل بدلاً من تجميدها، بشرط الحفاظ عليها على الثلج. ويمكن أيضاً استخدام هلامات البولي أكريلاميد المتوفرة تجارياً، بما في ذلك هلامات التدرج بنسبة 4–20%. ويمكن استخدام كواشف حجب بديلة، مثل الحليب المخصص للمختبرات أو 1% BSA في TBS-T، لاستبدال محلول الحجب الموصوف هنا. وبالمثل، يمكن استخدام محاليل حضانة أجسام مضادة بديلة، شريطة استبعاد أزيد الصوديوم من المحاليل التي تحتوي على أجسام مضادة ثانوية مقترنة بإنزيم بيروكسيديز الفجل، حيث إنه يثبط نشاط البيروكسيديز.
يمكن تكييف هذا البروتوكول أيضًا مع أنظمة تجريبية أخرى، بما في ذلك الخطوط الخلوية المشتقة من أنسجة مختلفة ونواتج تحلل الأنسجة. ومع ذلك، ونظرًا لأن سير العمل قد تم تحسينه بشكل أساسي في خلايا سرطان البنكرياس المشتقة من KPC، فينبغي النظر في مدى قابليته للتطبيق على نطاق أوسع بعناية. فقد تؤثر الاختلافات في نوع الخلايا، ومستويات الالتهام الذاتي الأساسية، وملفات تعبير البروتين، وتكوين العينات بشكل كبير على الكشف عن LC3. وبناءً على ذلك، فمن المرجح أن يتطلب التكيف مع أنظمة بديلة تحسينات إضافية، كما يجب دائمًا التحقق من توافق الأجسام المضادة مع الأنواع الخلوية قيد الدراسة.
يجب أيضاً التأكيد على وجود قيد أساسي في تحليل اللطخة المناعية لبروتين LC3. إن تراكم LC3-II وحده غير كافٍ لتحديد حالة الالتهام الذاتي بشكل قاطع، أو للتمييز بين زيادة تحفيز الالتهام الذاتي وضعف تصفية الجسيمات البلعمية الذاتية. ورغم أن LC3-II يتم إنتاجه أثناء تحفيز الالتهام الذاتي، إلا أنه يتحلل أيضاً داخل الليزوزومات كجزء من عملية الالتهام الذاتي. وبناءً على ذلك، فإن كلاً من تعزيز الالتهام الذاتي وضعف تدفق الالتهام الذاتي في المراحل التي تلي اقتران LC3 يمكن أن يؤديا إلى تراكم LC3-II26.
يظهر هذا القصور في التجارب الموضحة في الشكل 2A، B و الشكل 2E، F، حيث لوحظت مستويات مرتفعة من LC3-II في ظل ظروف بيولوجية متباينة. ففي الخلايا المعالجة بـ gemcitabine، يعكس تراكم LC3-II تحفيزاً نشطاً للبلعمة الذاتية يرتبط بزيادة تعبير VMP1 وتعزيز تحويل LC3-I إلى LC3-II11,19. وفي المقابل، يؤدي تثبيط VMP1 إلى إعاقة نضج الجسيمات البلعمية الذاتية وتصفيتها. وفي ظل هذه الظروف، تظل عملية إضافة الدهون لـ LC3 سليمة، ولكن يتأثر تحلل LC3-II بسبب خلل في تدفق البلعمة الذاتية، مما يؤدي إلى تراكم LC3-II رغم تعثر تقدم العملية البلعمية الذاتية22. وبما أنه لا يمكن التمييز بين هذه الحالات البيولوجية المتباينة من خلال لطخة مناعية لـ LC3 وحدها، فإن الأمر يتطلب اتباع مناهج تكميلية مثل تحليل SQSTM1/p62 واختبارات تثبيط الليزوزومات لتقييم تدفق البلعمة الذاتية بدقة26.
عندما يتم دمجها مع هذه النهج التكميلية، تظل طريقة لطخة المناعية لبروتين LC3 واحدة من أكثر الطرق سهولة وإفادة في مراقبة عملية الالتهام الذاتي. كما تعاني التقنيات البديلة من قيود أيضًا؛ فالتحديد الكمي لنقاط LC3 عن طريق التألق المناعي27 لا يمكنه التمييز بشكل موثوق بين زيادة الالتهام الذاتي وضعف التدفق، وقد يكون من الصعب توحيد معاييره وأتمتته. ومع ذلك، يتطلب التألق المناعي كمية أقل من المواد البيولوجية، وبالتالي قد يكون مفيدًا في حالة العينات السريرية المحدودة، مثل الخزعات البشرية. بالإضافة إلى ذلك، لا تتطلب لطخة المناعية لبروتين LC3 أنظمة مراسل تعتمد على عفن التحول (transfection)، مما يتجنب التداخلات الاصطناعية المرتبطة بالإفراط في تعبير البروتين. وأخيرًا، يفتقر قياس التدفق الخلوي التقليدي إلى الدقة الكافية للتمييز بين LC3-I و LC3-II، مما يحد من فائدته في تقييم نشاط الالتهام الذاتي.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
تم دعم هذا العمل من خلال منح مقدمة من المجلس الوطني للبحوث العلمية والتقنية (CONICET) [PIP 2021–2023 GI-11220200101549CO]، والوكالة الوطنية لتعزيز البحث والتطوير التكنولوجي والابتكار (Agencia I+D+i) [PICT-2021-I-A-00328]، و Universidad de Buenos Aires [UBACyT 2023–2025، 20020220300232BA]، ومؤسسة نوربرتو كويرنو، مدينة بوينس آيرس.
يشكر المؤلفون شركة البايولوجيا بخالص الامتنان على الدعم المالي من خلال منحة السفر الممنوحة من نماذج الأمراض &؛ الآليات. ساهم هذا الدعم في العمل الناتج عن الزيارة الممولة. تتوفر معلومات إضافية حول المؤسسة الخيرية على الرابط التالي: https://www.biologists.com/
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| ماسح اللطخة C-DiGit Blot Scanner | LI-COR BioScience | 3600 | يُستخدم للكشف بالتألق الكيميائي في الخطوة 5.6 |
| محلول ملحي منظم بالفوسفات (PBS) بتركيز 10x | Corning | 46-013-CM | يُستخدم لتحضير محلول PBS معقم بتركيز 1x لغسل الخلايا قبل عملية النقل في الخطوة 1.1. |
| 2-ميركابتويثانول (β-mercaptoethanol) | Sigma-Aldrich (Merck) | M3148 | يُستخدم لتحضير منظم عينات Laemmli بتركيز 4× لتحضير عينات SDS-PAGE في الخطوة 3.8. |
| هزاز ثلاثي الأبعاد 3D Shaker | DLAB | SK-D1807-E | يُستخدم لتحضين الأغشية في محاليل الحجب والأجسام المضادة الأولية والثانوية، وكذلك خلال خطوات الغسل (الخطوات 4.6، 4.8، 4.9، 4.11، 4.12، و4.13). |
| طبق زراعة خلايا 6 آبار | SORFA | SCP-11-006 | يُستخدم لاستزراع الخلايا في الخطوة 1.1. |
| أكريلاميد Acrylamide | Sigma-Aldrich (Merck) | A8887 | يُستخدم لتحضير هلام SDS-PAGE بتركيز 15% المطلوب للخطوات 4.2–4.5. |
| جسم مضاد لـ Glyceraldehyde-3-Phosphate Dehydrogenase، أحادي النسيلة للفئران، مستنسخ 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 التفاعلية: الإنسان، والقطط، والخنازير، والفئران، والأرانب، والأسماك، والكلاب، والجرذان. يُستخدم كضابط تحميل لتقييم كفاءة التعطيل (الشكلين 2C و2D). |
| جسم مضاد IgG للفئران، مرتبط بـ HRP | Cell Signaling Technology | 7076 | RRID: AB_330924. يُستخدم لتحضير محلول الجسم المضاد الثانوي في الخطوة 4.10. |
| جسم مضاد IgG للأرانب، مرتبط بـ HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. يُستخدم لتحضير محلول الجسم المضاد الثانوي في الخطوة 4.10. |
| جسم مضاد لـ β-Actin (ACTB)، أحادي النسيلة للفئران، AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 التفاعلية: الأغنام، ومكارب، والقطط، والدجاج، والجرذان، والفئران، وHirudo medicinalis، والأرانب، والكلاب، والخنازير، والإنسان، والأبقار، وخنازير غينيا. يُستخدم كضابط تحميل في الأشكال 2A، 2B، 2E، 2F، 2G، و2H. |
| أزرق بروموفينول Bromophenol blue | Sigma-Aldrich (Merck) | B0126 | يُستخدم لتحضير منظم عينات Laemmli بتركيز 4× لتحضير عينات SDS-PAGE في الخطوة 3.8. |
| حمض إيثيلين ثنائي أمين رباعي الخليك (EDTA) | Sigma-Aldrich (Merck) | E9884 | يُستخدم لتحضير منظم التحلل منخفض المنظفات (الشكلين 2G و2H). |
| مصل جنين البقر Fetal Bovine Serum | NATOCOR | Lintc-634 | يُستخدم لتحضير وسط كامل لزراعة الخلايا (الخطوتين 1 و2). |
| Fiji | برنامج مفتوح المصدر | N/A | برنامج تحليل الصور |
| غليسيرول Glycerol | Sigma-Aldrich (Merck) | G5516 | يُستخدم لتحضير منظم عينات Laemmli بتركيز 4× لتحضير عينات SDS-PAGE في الخطوة 3.8. |
| غليسين Glycine | Sigma-Aldrich (Merck) | G7126 | يُستخدم لتحضير منظم النقل للخطوة 4.5. |
| غشاء Immun-Blot PVDF، لفة، 0.2 µm، 26 cm x 3.3 m | Bio-Rad | 1620177 | يُستخدم للنقل في الخطوة 4.5. |
| منظم حجب Intercept (TBS) Blocking Buffer | LI-COR BioScience | 927-60001 | يُستخدم للحجب في الخطوة 4.6، ولتحضير محاليل الأجسام المضادة الأولية والثانوية في الخطوتين 4.7 و4.10. |
| جسم مضاد أحادي النسيلة للأرانب LC3 A/B (D3U4C) | Cell Signaling Technology | 12741 | RRID: AB_2617131 التفاعلية: الإنسان، والفئران، والأرانب. يُستخدم لتحضير محلول الجسم المضاد الأولي في الخطوة 4.7. |
| جسم مضاد أحادي النسيلة للأرانب LC3B (D11) | Cell Signaling Technology | 3868S | RRID: AB_2137707 التفاعلية: الإنسان. يُستخدم كجسم مضاد أولي لـ LC3 في الشكل 2H. |
| ميثانول Methanol | Anedra | 6197 | يُستخدم لتنشيط غشاء PVDF وتحضير منظم النقل في الخطوة 4.5. |
| وحدة فلترة حقنة Millex-HV، 0.45 μm PVDF | Merck Millipore | SLHV033RS | تُستخدم لفلترة الوسط المحتوي على الفيروسات البطيئة (الخطوة 1.1). |
| حمام جاف رقمي صغير Mini digital dry bath | Labnet International, Inc. | D 5060075 | يُستخدم لتسخين العينات في الخطوة 4.1. |
| نظام الترحيل الكهربائي Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | يُستخدم لعمليات SDS-PAGE والنقل في الخطوات 4.2، 4.3، و4.5. |
| MISSION shRNA يستهدف Vmp1 في الفئران (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | يُستخدم لإنتاج خطوط خلوية مستقرة مع تعطيل VMP1 (الخطوة 1.1). |
| N,N'-ميثيلين بيس-أكريلاميد (Bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | يُستخدم لتحضير هلام SDS-PAGE بتركيز 15% المطلوب للخطوات 4.2–4.5. |
| Nabigem 1g Gemcitabine | Microsules Argentina | M3060584-3 | يُستخدم للعلاج بـ gemcitabine في الخطوة 2. |
| محلول Pen-Strep | Sartorius | 03-031-1B | يُستخدم لتحضير وسط كامل لزراعة الخلايا (الخطوتين 1 و2). |
| طقم قياس البروتين Pierce BCA Protein Assay Kit | Thermo Fisher Scientific | 23227 | يُستخدم لتقدير كمية البروتين (الخطوة 3.7). |
| أقراص مثبط البروتياز Pierce Protease Inhibitor Tablets | Thermo Fisher Scientific | A32953 | تُستخدم لتحضير منظم التحلل في الخطوة 3.2. |
| Polyethylenimine HCl MAX، خطي (PEI MAX)، وزن جزيئي 40,000 | Polysciences | 24765-1 | يُستخدم للترانزفكشن باستخدام بلازميدات فيروسية بطيئة (الخطوة 1.1). |
| كلوريد البوتاسيوم (KCl) | Sigma-Aldrich (Merck) | P9333 | يُستخدم لتحضير PBS في الخطوة 3.1. |
| فوسفات البوتاسيوم أحادية القاعدة (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | يُستخدم لتحضير PBS في الخطوة 3.1. |
| مزود الطاقة PowerPac Basic Power Supply | Bio-Rad | 1645050 | يُستخدم لعمليات SDS-PAGE والنقل في الخطوات 4.2، 4.3، و4.5. |
| سلم بروتيني مسبق الصبغ Prestained ProteinLadder | Genbiotech | PM201 | يُستخدم لعمليات SDS-PAGE في الخطوات 4.2 - 4.4. |
| بوروميسين (محلول 10 mg/mL) | InvivoGen | ant-pr-1 | يُستخدم لاختيار الخلايا التي تم نقل الجينات إليها بشكل مستقر (الخطوة 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | يُستخدم لتحضير وسط كامل لزراعة الخلايا (الخطوتين 1 و2). |
| كلوريد الصوديوم (NaCl) | Sigma-Aldrich (Merck) | S9888 | يُستخدم لتحضير PBS في الخطوة 3.1، ومنظمات التحلل في الخطوة 3.2، وTBS في الخطوة 4.9. |
| دوديسيل كبريتات الصوديوم (SDS) | Sigma-Aldrich (Merck) | L3771 | يُستخدم لتحضير منظم التحلل في الخطوة 3.2 وهلام SDS-PAGE بتركيز 15% المطلوب للخطوات 4.2–4.5. |
| فلوريد الصوديوم (NaF) | Sigma-Aldrich (Merck) | S7920 | يُستخدم لتحضير منظم التحلل منخفض المنظفات (الشكلين 2G و2H). |
| فوسفات الصوديوم ثنائية القاعدة (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | يُستخدم لتحضير PBS في الخطوة 3.1. |
| جهاز طرد مركزي Sorval ST 16R Centrifuge | Thermo Fisher Scientific | 75004380 | يُستخدم لطرد الخلايا مركزياً في الخطوة 1.1 ونواتج التحلل في الخطوة 3.5. |
| مادة الركيزة للتألق الكيميائي SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | تُستخدم للكشف بالتألق الكيميائي في الخطوة 5.1. |
| خزانة السلامة البيولوجية Thermo Scientific 1300 Series A2 Class II, Type A2 | Thermo Fisher Scientific | 1386 | تُستخدم للتعامل المعقم مع زراعة الخلايا في الخطوات 1.1، 1.3، و2.1. |
| حضانة Thermo Scientific BB 150 CO2 Incubator | Thermo Fisher Scientific | BB150-2TCS-L | تُستخدم لزراعة الخلايا في الخطوتين 1.2 و2.2. |
| جسم مضاد أحادي النسيلة للأرانب TMEM49/VMP1 (D1Y3E) | Cell Signaling Technology | 12929 | RRID: AB_2714018 التفاعلية: الإنسان، والفئران، والجرذان. يُستخدم كجسم مضاد أولي للتحقق من كفاءة تعطيل VMP1 في الشكلين 2C و2D. |
| قاعدة تريس Tris base | Sigma-Aldrich (Merck) | T1503 | تُستخدم لتحضير منظم النقل للخطوة 4.5. |
| هيدروكلوريد التريس (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | يُستخدم لتحضير منظمات التحلل في الخطوة 3.2، ومنظم عينات Laemmli بتركيز 4× في الخطوة 3.8، وهلام SDS-PAGE بتركيز 15% المطلوب للخطوات 4.2–4.5، وTBS في الخطوة 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | يُستخدم لتحضير منظمات التحلل في الخطوة 3.2. |
| تريبسين EDTA Trypsin EDTA | Gibco | 11570626 | يُستخدم لنقل الخلايا في الخطوة 1.1. |
المراجع
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً