أدى إطار عمل متعدد المراحل، مرتكز جينياً ومدمج بين العشوائية المندلية، والترانسكريبتوميات الورمية، وتحليلات الخلية الواحدة، إلى تحديد MAP1LC3A كجين مرتبط بالموت الخلوي الحديدي (ferroptosis) ومرتبط بقابلية الإصابة بالورم الأرومي الدبقي، ومرشح للتحقق التجريبي مستقبلاً.
مقالة بحثية
أدلة جينية ونسخية وعلى مستوى الخلية المفردة متعددة المراحل تمنح الأولوية لجين MAP1LC3A من بين الجينات المرتبطة بالموت الخلوي الحديدي في الورم الأرومي الدبقي
34 مشاهدة
⸱
سبتمبر 11, 2026
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
لا يزال الورم الأرومي الدبقي (GBM) يشكل ورماً خبيثاً شديد العدوانية، ولا يزال مدى مساهمة الجينات المرتبطة بالموت الخلوي الحديدي (ferroptosis) في القابلية للإصابة بالمرض غير مفهوم بشكل كامل. تم تطبيق إطار عمل متعدد المراحل مرتكز جينياً لتحديد أولويات الجينات المرتبطة بالموت الخلوي الحديدي والمصاحبة للورم الأرومي الدبقي. ومن بين 483 جيناً تم جمعها من FerrDb V2، وجد أن 315 جيناً تمتلك مواقع سمات كمية للتعبير الجيني الموضعي (cis-eQTLs) مرشحة في eQTLGen، واحتفظ 250 جيناً بثلاث أدوات مستقلة على الأقل بعد تجميع عدم التوازن الارتباطي، وأنتج 226 جيناً تقديرات عشوائية مندلية (Mendelian randomization) صالحة بوزن التباين العكسي (IVW) باستخدام دراسة ارتباط جيني واسعة النطاق للورم الأرومي الدبقي شملت 6,183 حالة و18,169 مجموعة ضابطة. استوفت 34 جيناً معايير الاكتشاف الاستكشافية المتمثلة في P < 0.05 ومعدل اكتشاف كاذب (BH-FDR) وفق طريقة بنجاميني-هوتشبرج < 0.20، مع تقديرات عشوائية مندلية موزونة بايزية (BWMR) متوافقة اتجاهياً. ودعمت مرحلة تكرار العشوائية المندلية باستخدام cis-eQTLs للدم الكامل من GTEx V10 أربعة جينات هي: ATG7 وRPTOR وMAP1LC3A وCHMP6. وأظهر التقييم عبر ثلاث مجموعات نسخ ترانسكريبومية مستقلة من الأورام والمجموعات الضابطة أن MAP1LC3A كان منخفض التعبير باستمرار في أنسجة الورم وأظهر تقديراً مجمعاً ذا تأثيرات عشوائية دالاً إحصائياً (log₂ fold change، −1.273؛ فاصل ثقة 95%، من −1.625 إلى −0.920؛ معدل الاكتشاف الكاذب = 0.016)، بينما افتقرت الجينات الثلاثة الأخرى إلى دعم إحصائي مماثل عبر المجموعات. أجري لاحقاً تحليل تعطيل افتراضي أحادي الخلية في مجموعة فرعية متوازنة من المرضى مكونة من 2,400 خلية خبيثة تم اختيارها من 4,916 خلية مؤهلة عبر 20 ورماً أرومياً دبقياً لدى البالغين من النوع البري لـ IDH. وعبر خمس عمليات تشغيل بذرت بشكل مستقل، تم تحديد 3 و15 و4 و7 جينات قوية في المصب لكل من ATG7 وRPTOR وMAP1LC3A وCHMP6 على التوالي. وتكونت مجموعات الإجماع الناتجة من 17 جيناً فريداً، حيث كان RND3 مشتركاً بين جميع الأهداف الأربعة. وأشار تحليل الوجود الجيني (Gene Ontology) إلى إثراء في عمليات التصاق الخلايا وعمليات سطح الخلية، بينما لم تظل أي مسارات من KEGG أو Reactome دالة بعد تصحيح الاختبارات المتعددة. وإجمالاً، تضع هذه النتائج جين MAP1LC3A كأولوية للبحث التجريبي المستقبلي مع التمييز بين الارتباط الجيني، وتوافق التعبير الورمي، والاضطراب الحسابي، وبين الأدلة القاطعة على السببية أو الآلية.
المقدمة
لا يزال الورم الأرومي الدبقي (GBM) يمثل نموذجاً للأورام الخبيثة المقاومة للعلاج. وعلى الرغم من التصنيف الجزيئي الذي يزداد دقة والرعاية متعددة التخصصات، إلا أن التحسينات المستدامة في نتائج المرضى كانت محدودة1. بالنسبة للمرضى الذين يتمتعون بحالة صحية جيدة، تتكون الإدارة الحالية من أقصى استئصال آمن متبوعاً بالعلاج الإشعاعي مع استخدام متزامن وتكميلي لعقار temozolomide، وهو نظام علاجي تم إقراره في تجربة عشوائية بارزة وتم الإبقاء عليه في الإرشادات السريرية المعاصرة1,2. ومع ذلك، فإن الارتشاح المنتشر والتباين الخلوي والجزيئي الواسع يحدان من السيطرة المستدامة على المرض، ويعاني معظم المرضى في نهاية المطاف من تطور المرض أو ارتداده، وهو ما لا يوجد له علاج قياسي فعال عالمياً1,3. وتؤكد هذه الفجوة المستمرة بين التقدم في توصيف المرض والنتائج السريرية على الحاجة إلى تحديد الارتباطات الجزيئية ذات الصلة بيولوجياً والتي قد تساهم في وضع استراتيجيات علاجية جديدة للورم الأرومي الدبقي.
يُعد الموت الخلوي الحديدي (Ferroptosis) شكلاً من أشكال الموت الخلوي المنظم المعتمد على الحديد، والذي يتميز ببيروكسيد الفسفوليبيدات غير المنضبط وفشل الدفاعات المضادة للأكسدة الخلوية، مما يميزه من الناحية الميكانيكية عن الموت الخلوي المبرمج (apoptosis) وبرامج الموت الخلوي التقليدية الأخرى4,5. وتكتسب هذه العملية أهمية خاصة في الورم الأرومي الدبقي (GBM)، حيث تؤدي التغيرات الجينية والمرونة الأيضية إلى إعادة تشكيل التوازن الحديدي، والتوازن المختزل، وأيض الدهون. وقد أظهر التنميط المتكامل للجينوم والليبيدوم أن حذف جين CDKN2A يعيد توزيع الأحماض الدهنية غير المشبعة المتعددة القابلة للأكسدة، مما يخلق قابلية للإصابة بالموت الخلوي الحديدي تعتمد على النمط الجيني في نماذج الورم الأرومي الدبقي6. وبالمثل، حددت التحليلات المقترنة للأورام الأولية والمتكررة تغيرات مرتبطة بالانتكاس في جينات GPX4 و ACSL4 ومنظمات أخرى للموت الخلوي الحديدي7. كما تبين أن التعديل التجريبي لمسارات الدفاع ضد الموت الخلوي الحديدي يؤثر على الاستجابة لعقار تيموزولوميد (temozolomide) في خلايا الورم الأرومي الدبقي ونماذج الطعوم الغريبة8. وبشكل جماعي، تحدد هذه النتائج الموت الخلوي الحديدي كنقطة ضعف علاجية معقولة بيولوجياً في الورم الأرومي الدبقي. ومع ذلك، فإن هذه النتائج تعكس في المقام الأول ارتباطات بحالة الورم أو ملاحظات تجريبية تعتمد على السياق، ولا تثبت ما إذا كان التباين الدستوري في تعبير الجينات المرتبطة بالموت الخلوي الحديدي يساهم في القابلية الوراثية للإصابة بالورم الأرومي الدبقي.
اعتمدت معظم الدراسات البشرية التي بحثت في عملية الموت الخلوي الحديدي (ferroptosis) في الورم الدبقي على تحليلات التعبير التفاضلي، ونمذجة البقاء على قيد الحياة، وتحليلات التصنيف الجزيئي الفرعي باستخدام مجموعات بيانات TCGA وCGGA وGEO9,10. وعلى الرغم من أن هذه الدراسات أثبتت الأهمية الإنذارية للبرامج النسخية المرتبطة بالموت الخلوي الحديدي، إلا أن تصميمها الرصدي لا يمكنه تحديد ما إذا كان التعبير الجيني المتغير يساهم في القابلية للإصابة بالورم الأرومي الدبقي (GBM) أو يمثل بدلاً من ذلك نتيجة لتطور الورم. وقد حددت العشوائية المندلية على نطاق الترانسكريبتوم لاحقاً جينات منظمة جينياً وتعتمد على الأنسجة مرتبطة بخطر الإصابة بالورم الدبقي، بينما بدأت الدراسات الأحدث القائمة على موضع السمات الكمية للتعبير (eQTL) وموضع السمات الكمية للبروتين (pQTL) في تحديد الأولويات للأهداف العلاجية المحتملة للورم الأرومي الدبقي11,12. ومع ذلك، اعتمدت التحقيقات السابقة بشكل عام مناهج شاملة للترانسكريبتوم أو مناهج موجهة نحو الأهداف الدوائية بدلاً من تقييم مجموعة شاملة ومحددة مسبقاً من الجينات المرتبطة بالموت الخلوي الحديدي. علاوة على ذلك، قامت دراسات قليلة بدمج دراسة ارتباط جينومية واسعة النطاق (GWAS) كبيرة للورم الأرومي الدبقي مع العشوائية المندلية في مرحلة التكرار باستخدام مورد eQTL مستقل، يليه التقييم عبر مجموعات ترانسكريبتومية متعددة من الأورام والمجموعات الضابطة. ويعد هذا التمييز مهماً لأن التنظيم الجيني للتعبير الجيني يختلف بشكل كبير عبر الأنسجة، ولا يمكن افتراض أن ارتباطات eQTL المشتقة من الدم تعكس التأثيرات التنظيمية داخل أورام الدماغ11,13. لذلك، هناك حاجة إلى إطار عمل تكاملي يجمع بين الارتباط الجيني، والعشوائية المندلية في مرحلة التكرار، وترانسكريبتوميات الأورام عبر المجموعات، والتنبؤ الوظيفي أحادي الخلية المشتق من المرضى لتحديد الجينات المرتبطة بالموت الخلوي الحديدي والمدعومة بخطوط أدلة متقاربة على مشاركتها في الورم الأرومي الدبقي.
بحثت هذه الدراسة فيما إذا كان التعبير الجيني المنظم وراثياً للجينات المرتبطة بموت الخلايا الحديدي (ferroptosis) يرتبط بالقابلية للإصابة بورم الأرومة الدبقية (GBM). وقد تم الجمع بين العشوائية المندلية في مرحلتي الاكتشاف والتكرار مع تحليلات التعبير الجيني عبر ثلاث مجموعات مستقلة من النسوخ الورمية والمجموعات الضابطة. ثم تم تقييم الجينات التي دعمتها كلتا مرحلتي العشوائية المندلية في بيانات النسوخ أحادية الخلية المشتقة من المرضى باستخدام الاضطراب الافتراضي لتوصيف الاستجابات النسخية المتوقعة في الخلايا الخبيثة. وبدلاً من إعطاء الأولوية للجينات بناءً على بصمات التعبير الورمي وحدها، استفاد هذا الإطار متعدد المراحل أولاً من التباين الوراثي الموروث، ثم قام بتقييم أنماط التعبير ذات الصلة بالمرض إلى جانب ملفات الاضطراب الحاسوبية المحددة على مستوى الخلية. وقد استُخدمت الأدلة المتقاربة الناتجة لتحديد الجينات المرتبطة بموت الخلايا الحديدي ذات الأولوية لإجراء تحقيقات تجريبية مستقبلية في ورم الأرومة الدبقية (GBM).
البروتوكول
مُنحت هذه الدراسة إعفاءً من المراجعة الأخلاقية من قبل لجنة الأخلاقيات الطبية في مستشفى الشعب الأول في تشاوتشينغ (مرجع رقم B2026-08-03). استخدمت الدراسة بيانات جينية وترانسكريبتومية ملخصة ومجهولة الهوية تم جمعها بأثر رجعي، بما في ذلك بيانات محدودة الوصول ومعتمدة من لجنة الوصول إلى البيانات من EGAD00010001657 ومجموعات بيانات تم الحصول عليها من GEO وeQTLGen وGTEx وفقاً لشروط الوصول والاستخدام المعمول بها. لم يتم تجنيد مشاركين جدد، ولم يتم جمع عينات حيوية، ولم يتم الوصول إلى أي بيانات قابلة لتحديد هوية المشاركين. حصل منشئو البيانات المعنيون على الموافقة الأخلاقية والموافقة المستنيرة للدراسات الأصلية، واستُخدمت البيانات محدودة الوصول وفقاً لاتفاقية الوصول إلى البيانات المعمول بها.
تصميم الدراسة
استخدمت هذه الدراسة إطار عمل متعدد المراحل لتحديد أولويات الجينات المرتبطة بموت الخلايا الحديدي (ferroptosis) والمتعلقة بقابلية الإصابة بالورم الأرومي الدبقي (GBM)، ولتقييم تأثيراتها النسخية ذات الصلة بالمرض (الشكل 1). أولاً، تم تقييم الجينات المرتبطة بموت الخلايا الحديدي والتي تم جمعها من FerrDb V2 باستخدام العشوائية المندلية (MR) لعينتين، مع بيانات موقع السمات الكمية للتعبير الجيني المتجاورة (cis-eQTL) ودراسة ارتباط واسعة النطاق للجينوم بالمرض (GWAS) خاصة بالورم الأرومي الدبقي. واعتُمدت العشوائية المندلية المرجحة بتباين عكسي (IVW MR) كطريقة الفحص الأساسية، بينما وفرت العشوائية المندلية المرجحة بايزياً (BWMR) تقييماً تكميلياً لمدى المتانة، واستُخدمت مجموعة بيانات eQTL مستقلة لمرحلة تكرار العشوائية المندلية. ثانياً، تم تقييم الجينات التي دعمتها التحليلات الجينية عبر ثلاث مجموعات نسخية مستقلة (ورم مقابل مجموعة ضابطة)، تلاها تحليل تجميعي (meta-analysis) عبر هذه المجموعات. ثالثاً، استُخدمت بيانات النسخ أحادية الخلية المشتقة من المرضى لإجراء اضطراب جيني افتراضي في الخلايا الخبيثة وتحديد استجابات نسخية لاحقة قابلة للتكرار. ومن ثم تم توصيف هذه الاستجابات من خلال الإثراء الوظيفي وتحليلات الشبكات المشتركة. وبشكل عام، صُممت التحليلات الجينية لتحديد الجينات المرتبطة بقابلية الإصابة بالورم الأرومي الدبقي، بينما قيمت التحليلات النسخية وأحادية الخلية التوافق البيولوجي وصاغت فرضيات للتحقق التجريبي اللاحق.
مصادر البيانات
تم الحصول على الجينات المرتبطة بالموت الخلوي الحديدي (Ferroptosis) من قاعدة بيانات FerrDb V2، مما أسفر عن 483 جينًا بشريًا فريدًا يشفر البروتينات بعد توحيد رموز الجينات وإزالة المدخلات المكررة14. استُخدمت إحصائيات ملخصة لمواقع السمات الكمية للتعبير الجيني المتجاوز (cis-eQTL) في الدم الكامل من اتحاد eQTLGen كمجموعة بيانات التعرض لمرحلة الاكتشاف في العشوائية المندلية (MR)، بينما عملت بيانات cis-eQTL في الدم الكامل من إصدار GTEx V10 كمجموعة بيانات تعرض مستقلة لمرحلة تكرار العشوائية المندلية11,15. تم الحصول على ارتباطات نتائج الورم الأرومي الدبقي (GBM) من إحصائيات ملخصة لدراسة الارتباط الجينومي الكامل (GWAS) ذات الوصول المقيد والمتاحة عبر الأرشيف الأوروبي للجينوم والنمط الظاهري، والتي شملت 6,183 حالة و18,169 ضابطًا من أصول أوروبية16. تم تقييم التعبير على مستوى الأنسجة للجينات ذات الأولوية الوراثية عبر ثلاث مجموعات مستقلة من أرشيف التعبير الجيني (GEO): GSE196533، والتي تضم 61 عينة من الورم الدبقي من الدرجة 4 تم تصنيفها كـ GBM في البيانات الوصفية المودعة وتسع عينات من الدماغ غير الورمية؛ وGSE4290، التي تضم عينات من GBM وعينات دماغ غير ورمية ناتجة عن الصرع؛ وGSE116520، التي تحتوي على عينات مزدوجة من لب الورم والأنسجة المحيطة بالورم إلى جانب ضوابط غير ورمية17,18,19. استُخدمت بيانات Smart-seq2 المستمدة من المرضى من GSE131928 لتحليل الاضطراب الافتراضي للخلايا الخبيثة20. وتلخص Table 1 خصائص مجموعات البيانات وأدوارها التحليلية respective. أُجريت جميع التحليلات باستخدام مجموعات بيانات تم جمعها سابقًا ومجهولة الهوية، والتي تم الحصول على الموافقة الأخلاقية والموافقة المستنيرة لها في الدراسات الأصلية.
اختيار الأداة الجينية وتنسيق البيانات
اقتصرت الأدوات المرشحة على مواقع السمات الكمية للتعبير الجيني في الموقع نفسه (cis-eQTLs) المرتبطة بالتعبير الجيني بدلالة إحصائية على مستوى الجينوم كاملاً (P < 5 × 10⁻8). تم تجميع المتغيرات باستخدام اللوحة المرجعية الأوروبية من مشروع 1000 Genomes Project مع عتبة عدم توازن الارتباط (LD) تبلغ r2 < 0.001 ضمن نافذة قدرها 10,000-kb. وقد استُبعدت الجينات التي احتفظت بأقل من ثلاث أدوات مستقلة بعد عملية التجميع من تحليل العشوائية المندلية (MR) الأساسي. ونظراً لهدف الفحص الاستكشافي، تم تحديد حد أدنى من ثلاث أدوات مسبقاً للاحتفاظ بالجينات ذات الدعم الضعيف ولكن القوي من cis-eQTL، مع السماح بتقدير IVW متعدد الأدوات. وقد رافق هذه العتبة تجميع LD صارم وتصفية بناءً على إحصائية F؛ حيث فُسرت التقديرات المستندة إلى ثلاث أو أربع أدوات فقط بحذر، وأُجريت تحليلات الحساسية فقط عندما تكون قابلة للتطبيق منهجياً. تم تقييم قوة الأداة لكل متغير باستخدام إحصائية F (F = β2/SE2)، حيث تمثل β و SE تقدير تأثير cis-eQTL والخطأ المعياري الخاص به، على التوالي. واستُبعدت المتغيرات التي كانت قيمة F لها < 10 لتقليل انحياز الأدوات الضعيفة21,22. تم توحيد مجموعات بيانات التعرض والنتائج عن طريق محاذاة أليلات التأثير واتجاهات التأثير. كما استُبعدت المتغيرات المكررة، والمتغيرات غير المتوفرة في مجموعة بيانات GBM GWAS، والمتغيرات ذات ترميز الأليلات غير المتوافق. وبسبب عدم توفر ترددات أليلات التأثير لـ GBM GWAS، تمت إزالة المتغيرات المتناظرة (palindromic variants) ذات التوجه الغامض للشريط بدلاً من استنتاجها. وللسبب نفسه، لم يتم إجراء اختبار Steiger الرسمي لتحديد الاتجاه.
تحليلات العشوائية المندلية
تم تقييم الارتباط بين التعبير الجيني المتنبأ به وراثياً وقابلية الإصابة بورم الأرومة الدبقية (GBM) باستخدام العشوائية المندلية (MR) ذات العينتين. في مرحلة الاكتشاف، تم تضمين الجينات التي تمتلك ثلاثة أدوات على الأقل من مواقع السمات الكمية للتعبير الجيني الموضعي (cis-eQTL) المستقلة، واستُخدمت طريقة الترجيح بتباين عكسي (IVW) كنهج تحليلي أساسي. تم تسجيل تقديرات التأثير كنسب أرجحية (ORs) مع فترات ثقة (CIs) بنسبة 95% لكل زيادة وحدة في التعبير الجيني المتنبأ به وراثياً. ولتلافي تأثير الاختبارات المتعددة عبر الجينات التي تم تقييمها، تم تعديل قيم P الخاصة بطريقة IVW باستخدام إجراء بنجاميني-هوشبيرج23. تم الاحتفاظ بالجينات التي كانت قيمة P لها < 0.05 ومعدل الاكتشاف الكاذب لبنجاميني-هوشبيرج (BH-FDR) < 0.20 كمرشحات استكشافية. تم اختيار عتبة FDR التساهلية نسبياً هذه لتقليل الاستبعاد المبكر للجينات التي قد تكون ذات صلة خلال مرحلة الاكتشاف؛ وبناءً على ذلك، تم تفسير حالة الترشيح بالتزامن مع التحليلات اللاحقة بدلاً من اعتبارها دليلاً تأكيدياً. بعد ذلك، تم تطبيق العشوائية المندلية المرجحة بايزياً (BWMR) على المرشحات في مرحلة الاكتشاف باستخدام نفس الأدوات المنسقة24. وتم تقييم التوافق بين نتائج IVW و BWMR بناءً على كل من الدلالة الإحصائية واتجاه التأثير. وحيثما سمح عدد الأدوات المتاحة، تم إجراء اختبار كوكراين Q، واختبار تقاطع MR-Egger، و MR-PRESSO، وتحليلات استبعاد عنصر واحد (leave-one-out) لتقييم التغاير، وتعدد التأثيرات الأفقي، والمتغيرات الشاذة المؤثرة، وتأثير تعدد أشكال النوكليوتيدات المفردة (SNPs) الفردية22.
أُجريت عملية التكرار (Replication-stage MR) باستخدام بيانات cis-eQTL للدم الكامل من إصدار GTEx V10. طُبقت طريقة نسبة Wald عندما توفرت أداة واحدة فقط، بينما استُخدمت طريقة IVW للجينات التي تتوفر لها أداتان أو أكثر. عُرِّف التكرار بأن يكون P < 0.05، وBH-FDR < 0.20، مع اتجاه تأثير يتوافق مع التقدير المقابل في مرحلة الاكتشاف. ونظراً لأن العديد من تقديرات التكرار في GTEx استندت إلى أداة واحدة أو أداتين فقط، فقد تم تفسيرها كأدلة داعمة للتكرار بدلاً من كونها أدلة مستقلة على السببية.
التقييم النسخي عبر المجموعات
تم تقييم الجينات الأربعة التي تم تحديد أولويتها من خلال تحليلات العشوائية المندلية (MR) في مرحلتي الاكتشاف والتكرار عبر ثلاث مجموعات نسخ ترانسكريبتومية مستقلة. بالنسبة للمجموعة GSE196533، تم تحليل بيانات عد تسلسل RNA الخام باستخدام DESeq225. استُبعدت الجينات التي كانت أعدادها أقل من 10 في جميع العينات باستثناء عينتين، بينما تم الاحتفاظ بالجينات الأربعة المستهدفة بغض النظر عن تصفية التعبير الجيني. تم تقييم التعبير التفاضلي بين 61 عينة من الورم الدبقي من الدرجة 4 والمصنفة كـ GBM في البيانات الوصفية المودعة وتسع عينات دماغية غير ورمية.
بالنسبة لـ GSE4290، تم استبعاد أربع عينات تفتقر إلى تشخيص نسيجي مرضي صريح، مما ترك 77 عينة من GBM و23 عينة من أنسجة الدماغ غير الورمية. خضعت شدة إشارات المصفوفات الدقيقة المعالجة لتحويل log2، وتطبيع كمي (quantile-normalized)، وتم تحليلها باستخدام نماذج بيز الخطية التجريبية القوية المطبقة في limma26. وعندما ارتبطت مجسات متعددة بنفس الجين، تم اختيار المجس الذي سجل أعلى متوسط تعبير عبر جميع العينات المشمولة، وذلك بشكل مستقل عن دلالة التعبير التفاضلي.
تألفت مجموعة GSE116520 من عينات مقترنة من لب الورم والمناطق المحيطة بالورم لـ 17 مريضاً، بالإضافة إلى ثماني عينات ضابطة غير ورمية. تم تحليل بيانات التعبير الجيني المودعة، والتي خضعت لتحويل لوغاريتمي وتطبيع كمي، باستخدام حزمة limma. وتمت مراعاة الارتباطات داخل المريض الواحد بين عينات لب الورم والعينات المحيطة بالورم باستخدام الحجب على مستوى المريض ودالة duplicateCorrelation. كانت المقارنة المحددة مسبقاً للتحليل التلوي عبر المجموعات هي لب الورم مقابل العينات الضابطة، بينما تم تقييم المقارنات المحيطة بالورم والاتجاه المرتب (عينة ضابطة-محيط الورم-لب الورم) بشكل منفصل.
تم تجميع التغيرات في طية log2 والأخطاء المعيارية الخاصة بكل دراسة باستخدام نموذج التأثيرات العشوائية للقدر الأقصى المقيد للاحتمال (restricted maximum-likelihood random-effects model) مع استنتاج Hartung–Knapp، كما هو مُنفذ في metafor. تم تقييم التباين بين الدراسات باستخدام إحصائية Cochran's Q و I2. كما تم تعديل قيم P المجمعة للجينات الأربعة المستهدفة باستخدام إجراء Benjamini–Hochberg. وعُرِّف الدعم النسخي القوي بأن يكون معدل الاكتشاف الخاطئ (FDR) في التحليل التلوي < 0.05، مع دلالة FDR على مستوى المجموعة في مجموعتي بيانات اثنتين على الأقل، واتجاهات تأثير متوافقة عبر المجموعات الثلاث جميعها.
تحليل التعطيل الافتراضي للجينات على مستوى الخلية الواحدة
استُخدمت بيانات Smart-seq2 المستمدة من المرضى من مجموعة GSE131928 لتقييم الجينات الأربعة المكررة في MR في الخلايا الخبيثة. تم تحديد الخلايا الخبيثة لدى البالغين وفقاً للتوصيفات الواردة في الدراسة الأصلية، وسُحبت أعداد متساوية من الخلايا عشوائياً من كل مريض مؤهل لتقليل عدم التوازن في تمثيل المرضى. أُجري التعطيل الافتراضي (Virtual knockout) باستخدام scTenifoldKnk وكُررت العملية عبر خمس جولات مستقلة. واعتُبرت الجينات التي سجلت قيمة P < 0.05 مصححة وفق طريقة Benjamini–Hochberg في جولة واحدة ذات دلالة إحصائية. وعُرّفت الجينات المصبة (Downstream genes) التي تكررت في ثلاث جولات على الأقل من أصل خمس جولات بأنها مجموعة الإجماع الأساسية، بينما استُخدم معيار أكثر صرامة (أربع من أصل خمس جولات) لتحليل الحساسية. وفُسرت هذه النتائج على أنها تنبؤات حاسوبية للاضطراب النسخي وليس دليلاً على تنظيم جزيئي مباشر.
تحليل الإثراء الوظيفي وتحليل الشبكة المشتركة
أُجري تحليل الإثراء الوظيفي باستخدام جينات المصب المحددة للأهداف والتي تم تحديدها بشكل قابل للتكرار في ثلاث على الأقل من خمس عمليات تعطيل افتراضية. تم تقييم إثراء مسارات Gene Ontology (GO) و Kyoto Encyclopedia of Genes and Genomes (KEGG) و Reactome باستخدام اختبارات توزيع هيبرجيومتري أحادية الجانب، مع استخدام الجينات الـ 1,004 المدرجة في استنتاج الشبكة كمجموعة جينات خلفية. تم تعديل قيم P بشكل منفصل لكل قاعدة بيانات تعليق توضيحي باستخدام إجراء Benjamini–Hochberg، واعتُبرت قيمة P المعدلة < 0.05 ذات دلالة إحصائية.
تم بناء شبكة ثنائية الأجزاء لتمثيل العلاقات بين الأهداف الأربعة المعطلة (knockout targets) وجيناتها المتفق عليها في المصب (downstream genes). تم تحديد الجينات المرتبطة بأهداف متعددة بناءً على درجتها المشتركة، كما تم قياس التداخل بين مجموعات الجينات الخاصة بكل هدف باستخدام تعدادات التقاطع ومؤشرات جاكارد (Jaccard indices). تمثل حواف الشبكة الارتباطات بين الاضطرابات الحسابية القابلة للتكرار، ولا ينبغي تفسيرها على أنها دليل على تفاعلات جزيئية مباشرة.
التحليل الإحصائي وقابلية التكرار
ما لم ينص على خلاف ذلك، كانت الاختبارات الإحصائية ثنائية الجانب، وتم التحكم في المقارنات المتعددة باستخدام إجراء Benjamini–Hochberg. تم وصف معايير الدلالة الخاصة بكل تحليل في الأقسام الفرعية المقابلة. أُجريت جميع التحليلات باستخدام R أو Python. استخدمت الإجراءات العشوائية بذوراً محددة مسبقاً، وتم أرشفة الكود التحليلي وإصدارات البرمجيات وإعدادات المعلمات التفصيلية لدعم إمكانية إعادة الإنتاج. جُمعت جميع مجموعات البيانات مسبقاً وتم إخفاء الهوية منها؛ كما تم الحصول على الموافقة الأخلاقية والموافقة المستنيرة في الدراسات الأصلية.
النتائج
اختيار الجينات المرتبطة بموت الخلايا الحديدي والأدوات الجينية
تم الحصول على ما مجموعه 483 جيناً مرتبطاً بالموت الخلوي الحديدي (ferroptosis) من قاعدة بيانات FerrDb V2 (الشكل 1). ومن بين هذه الجينات، تم مطابقة 315 جيناً مع مجموعة بيانات eQTLGen وكان لديها موقع سمة كمية للتعبير الجيني الموضعي (cis-eQTL) مرشح واحد على الأقل. وبعد عملية تجميع عدم التوازن الارتباطي (linkage disequilibrium clumping)، احتفظ 250 جيناً بثلاث أدوات مرشحة مستقلة على الأقل. وعقب البحث عن المتغيرات المرتبطة بالنتائج، وتنسيق الأليلات، وضبط الجودة، أنتج 226 جيناً تقديرات صالحة لوزن التباين العكسي (IVW) وأُدرجت في تحليل العشوائية المندلية (MR) في مرحلة الاكتشاف (الملحق 1). وكانت جميع الأدوات الـ 3,578 المحتفظ بها في تحليل مرحلة الاكتشاف ذات إحصائيات F >10 (الحد الأدنى 29.72؛ والوسيط 70.76)، مما يشير إلى عدم وجود دليل على تحيز الأدوات الضعيفة. ومن بين 34 جيناً مرشحاً في مرحلة الاكتشاف، كان وسيط إحصائية F هو 67.22، بحد أدنى قدره 29.72.
تحدد مرحلة الاكتشاف من دراسة المندلية العشوائية (MR) الجينات المرتبطة بـ ferroptosis والتي ترتبط بقابلية الإصابة بـ GBM
من بين 226 جينًا قدمت تقديرات IVW صالحة، استوفى 34 جينًا معايير مرحلة الاكتشاف المحددة مسبقًا وهي IVW P < 0.05 ومعدل الاكتشاف الكاذب لبنجاميني-هوخبيرغ (BH-FDR) < 0.20، وشملت 19 ارتباطًا عكسيًا و15 ارتباطًا إيجابيًا بقابلية الإصابة بـ GBM (الشكل 2A). لوحظ أقوى دليل إحصائي لكل من RPTOR (OR = 0.809, 95% CI 0.737–0.887; P = 7.02 × 10⁻6; BH-FDR = 0.0012) و PLA2G6 (OR = 1.568, 95% CI 1.281–1.920; P = 1.08 × 10⁻5; BH-FDR = 0.0012). كانت تقديرات العشوائية المندلية الموزونة بايزياً (BWMR) ذات دلالة اسمية ومتوافقة من حيث الاتجاه مع تقديرات IVW لجميع الجينات المرشحة الـ 34 (الشكل 2A). لم تقدم اختبارات تقاطع MR-Egger أي دليل على وجود تعددية تأثيرات أفقية اتجاهية. وكشف اختبار Cochran's Q عن وجود تباين فقط لـ MAP1LC3A (P = 0.043)، بينما لم تحدد الاختبارات العالمية لـ MR-PRESSO أي تشويه كبير للقيم المتطرفة بين 33 جينًا قابلاً للتقييم. تعذر إجراء MR-PRESSO لـ SLC7A11 بسبب توفر ثلاث أدوات فقط (الملف التكميلي 1). تظهر تحليلات استبعاد عنصر واحد الخاصة بالجينات، ومخططات مقارنة الطرق، ومخططات القمع للجينات الأربعة التي تم تكرارها لاحقاً في الشكل التكميلي 1. تم تقييم المرشحين الـ 34 في مرحلة الاكتشاف لاحقاً باستخدام مجموعة بيانات eQTL مستقلة. ومن بين هؤلاء، امتلك 26 جينًا أدوات كافية لمرحلة تكرار MR، واستوفى أربعة منهم معايير التكرار المحددة مسبقًا.
يدعم تكرار المندلية العشوائية (MR) المستقل أربعة مرشحين في مرحلة الاكتشاف
من بين 34 مرشحاً في مرحلة الاكتشاف، كان لدى 26 مرشحاً أداة cis-eQTL مؤهلة واحدة على الأقل في دم كامل من GTEx V10، وتم إدراجهم في تحليل MR في مرحلة التكرار. تم تمثيل ثلاثة عشر جيناً بأداة واحدة وتم تحليلها باستخدام نسبة Wald، بينما كان لدى الـ 13 جيناً المتبقية أداتان أو أكثر وتم تحليلها باستخدام IVW. استوفت أربعة جينات معايير التكرار المحددة مسبقاً وهي P < 0.05، وBH-FDR < 0.20، واتجاه تأثير متوافق مع تقدير مرحلة الاكتشاف (الشكل 2B؛ الملف التكميلي 1).
ارتبط التعبير الجيني المتوقع المرتفع لكل من ATG7 (OR = 0.523, 95% CI 0.330–0.831; P = 0.0061; BH-FDR = 0.0976)، و RPTOR (OR = 0.718, 95% CI 0.563–0.915; P = 0.0075; BH-FDR = 0.0976)، و MAP1LC3A (OR = 0.830, 95% CI 0.717–0.959; P = 0.0117; BH-FDR = 0.1012) بانخفاض القابلية للإصابة بـ GBM. وفي المقابل، ارتبط التعبير الجيني المتوقع المرتفع لـ CHMP6 بزيادة القابلية للإصابة (OR = 1.378, 95% CI 1.032–1.838; P = 0.0295; BH-FDR = 0.1916). كانت اتجاهات التأثير للجينات الأربعة جميعها متوافقة مع تلك التي لوحظت في تحليل مرحلة الاكتشاف. ولم يتم اكتشاف أي تباين معنوي بين الجينات التي أمكن حساب قيمة Cochran's Q لها (الملف التكميلي 1). ونظراً لأن معظم تقديرات التكرار استندت إلى أداة واحدة أو أداتين فقط، فقد كانت الاختبارات الرسمية للتعددية المظاهرية الأفقية وتشوه القيم المتطرفة قابلة للتطبيق على مجموعة محدودة فقط من الجينات (الملف التكميلي 1). تتوفر الرسوم البيانية التشخيصية المقابلة لـ MAP1LC3A و RPTOR و CHMP6 في الشكل التكميلي 2. أما ATG7 فلم يكن مؤهلاً لتحليلات التشخيص متعددة الأدوات لأن تقدير تكراره اشتُق من نسبة Wald لأداة واحدة.
التقييم الترانسكريبتومي عبر المجموعات يمنح الأولوية لـ MAP1LC3A
تم تقييم الجينات الأربعة التي دعمتها تحليلات العشوائية المندلية (MR) في كل من مرحلتي الاكتشاف والتكرار عبر ثلاث مجموعات نسخ ترانسكريبتومية مستقلة تمثل منصات تعبير مختلفة (الشكل 3؛ الجدول 2؛ الشكل التكميلي 3؛ الملف التكميلي 1). وقد انخفض تعبير MAP1LC3A باستمرار في أنسجة الورم عبر المجموعات الثلاث جميعها: GSE196533 (log₂FC = −1.553, transcriptome-wide FDR = 3.21 × 10⁻8)، وGSE4290 (log₂FC = −1.243, FDR = 3.55 × 10⁻12)، ولب الورم مقابل الضابط غير الورمي في GSE116520 (log₂FC = −1.204, FDR = 9.78 × 10⁻8). وفي GSE116520، كان تعبير MAP1LC3A أيضاً أقل في الأنسجة المحيطة بالورم مقارنة بالضوابط غير الورمية (log₂FC = −1.056, FDR = 2.85 × 10⁻6)، مع وجود اتجاه تناقصي ملحوظ من الضابط مروراً بالأنسجة المحيطة بالورم وصولاً إلى لب الورم (trend coefficient = −0.531, FDR = 8.59 × 10⁻6).
أكد تحليل ميتا التحليلي للتأثيرات العشوائية انخفاض تعبير MAP1LC3A بشكل ملحوظ في أنسجة الورم (pooled log₂FC = −1.273, 95% CI −1.625 to −0.920; Hartung–Knapp P = 0.0041; BH-FDR = 0.016)، مع عدم وجود دليل على تباين بين الدراسات (I2 = 0%; الملف التكميلي 1). وكان تعبير RPTOR منخفضاً باستمرار عبر جميع المجموعات الثلاث الثلاث، ووصل إلى دلالة إحصائية على مستوى الترانسكريبتوم في GSE4290، على الرغم من أن تقديره المجمع لم يكن ذا دلالة إحصائية (log₂FC = −0.258, 95% CI −0.655 to 0.139; BH-FDR = 0.196; I2 = 42.3%). أما تعبير CHMP6 فقد كان أعلى باستمرار في أنسجة الورم ووصل إلى الدلالة الإحصائية في GSE4290، بينما ظل التقدير المجمع غير دال إحصائياً (log₂FC = 0.150, 95% CI −0.130 to 0.431; BH-FDR = 0.196; I2 = 52.0%). وأظهر ATG7 اختلافات طفيفة وغير متسقة اتجاهياً عبر المجموعات، ولم يظهر أي ارتباط مجمع ذو دلالة (log₂FC = 0.036, 95% CI −0.073 to 0.146; BH-FDR = 0.291; I2 = 0%). وبناءً على ذلك، من بين الجينات الأربعة التي تمت إعادة تكرارها بواسطة MR، أظهر MAP1LC3A أقوى الأدلة وأكثرها اتساقاً على التعبير التفاضلي المرتبط بالورم.
يكشف التعطيل الافتراضي للجينات على مستوى الخلية الواحدة عن اضطرابات نسخية محددة للهدف وقابلة للتكرار
تم تقييم الجينات الأربعة التي تم تكرارها بواسطة MR في 4,916 خلية خبيثة مؤهلة من 20 ورماً من أورام GBM لدى البالغين من النوع البري لـ IDH في GSE131928. وقد تم اكتشاف ATG7 و RPTOR و MAP1LC3A و CHMP6 في 42.78% و 45.89% و 46.89% و 31.90% من الخلايا الخبيثة المؤهلة، على التوالي، مما يدعم إدراجها في تحليل التعطيل الافتراضي (الشكل التكميلي 4؛ الملف التكميلي 1). ولتقليل عدم التوازن في تمثيل المرضى، تم أخذ عينات عشوائية من 120 خلية من كل ورم، مما أنتج مجموعة بيانات متوازنة للمرضى تتكون من 2,400 خلية خبيثة. تم تقييم كل جين مستهدف عبر خمس عمليات تشغيل ذات بذور مستقلة، مما أدى إلى إجراء 20 تحليلاً للتعطيل الافتراضي.
باستخدام المعيار المحدد مسبقاً BH-FDR < 0.05 في ثلاث تجارب على الأقل من أصل خمس، حدد التعطيل الافتراضي (virtual knockout) ثلاثة جينات قوية المصب لـ ATG7، و15 جينة لـ RPTOR، وأربعة لـ MAP1LC3A، وسبعة لـ CHMP6 (الشكل 4A؛ الشكل التكميلي 5). وتألفت مجموعة الإجماع لـ RPTOR من RND3، وNKAIN4، وCHI3L1، وCDKN1A، وBCAN، وPDGFRA، وOLIG1، وLHFPL3، وENO2، وHILPDA، وLGALS3، وANXA1، وCNTN1، وNAMPT، وSCRG1. وشملت مجموعة الإجماع لـ MAP1LC3A كل من RND3، وCD24، وBCAN، وS100B، بينما احتوت مجموعتا الإجماع لـ ATG7 وCHMP6 على ثلاثة وسبعة جينات على التوالي. وأدى تطبيق معيار دلالة أكثر صرامة في أربع تجارب على الأقل من أصل خمس إلى تقليص مجموعات الإجماع إلى جينين مرتبطين بـ ATG7، وتسعة جينات مرتبطة بـ RPTOR، وجين واحد مرتبط بـ MAP1LC3A، وأربعة جينات مرتبطة بـ CHMP6. وبشكل جماعي، حددت هذه التحليلات اضطرابات نسخية قابلة للتكرار ومحددة الهدف ضمن الشبكة التنظيمية المستنتجة للخلايا الخبيثة.
تحدد تحليلات الإثراء الوظيفي والشبكات المشتركة استجابات متقاربة مرتبطة بالالتصاق
تكونت المجموعات التوافقية الأربع الخاصة بالأهداف من 17 جيناً فريداً في المصب. وقد حدد تحليل الشبكة أن RND3 هو الجين الوحيد المشترك بين جميع عمليات التعطيل الافتراضية الأربع، بينما تشارك كل من BCAN و CD24 و NKAIN4 في ثلاث من عمليات التعطيل الافتراضية الأربع. وكانت الجينات CHI3L1 و LHFPL3 و PDGFRA مشتركة بين هدفين، بينما كانت الجينات العشرة المتبقية خاصة بكل هدف (الشكل 4B,C). وحدث أكبر تداخل مطلق بين زوجين بين RPTOR و CHMP6، واللذين اشتركا في ستة جينات في المصب. وبناءً على تشابه جاكارد (Jaccard similarity)، لوحظ أكبر تداخل نسبي بين ATG7 و CHMP6 (مؤشر جاكارد = 0.429)، يليه RPTOR–CHMP6 و MAP1LC3A–CHMP6 (كلاهما 0.375).
حدد تحليل الوجود الجيني (Gene Ontology) لمجموعة الإجماع المجمعة المكونة من 17 جينًا عشرة مصطلحات مثرية بشكل ملحوظ بعد تصحيح بنجاميني-هوكبرج (الشكل 4D؛ الشكل التكميلي 6). وشملت مصطلحات العمليات البيولوجية المثرية التصاق الخلايا (BH-FDR = 0.0028)، والتنظيم الإيجابي لتكاثر الجماعات الخلوية (BH-FDR = 0.0028)، والاستجابة الالتهابية (BH-FDR = 0.0139)، والتنظيم الإيجابي لشلال ERK1/ERK2 (BH-FDR = 0.0165)، والالتصاق الخلوي-الخلوي (BH-FDR = 0.0196). كما شملت مصطلحات المكونات الخلوية ذات الدلالة سطح الخلية، والمنطقة خارج الخلية، والغشاء البلازمي، والمصفوفة خارج الخلوية، بينما كان ارتباط الكربوهيدرات هو المصطلح الوحيد المثرى بشكل ملحوظ ضمن الوظائف الجزيئية. وظل التصاق الخلايا مثرياً بشكل ملحوظ عندما اقتصر التحليل على الجينات المشتركة بين هدفين على الأقل، وعند تطبيق معيار إجماع "أربعة من خمسة تشغيلات" الأكثر صرامة. ولم يتبقَّ أي مسار من مسارات KEGG أو Reactome ذا دلالة بعد تصحيح BH.
كان الإثراء النوعي للأهداف أكثر شمولاً بالنسبة لـ RPTOR، حيث أظهرت مجموعة الإجماع الخاصة به والمكونة من 15 جيناً إثراءً لأربعة مصطلحات من العمليات البيولوجية وأربعة مصطلحات من المكونات الخلوية (الشكل التكميلي 7). أما مجموعة الإجماع لـ MAP1LC3A فقد أظهرت إثراءً لالتصاق الخلايا (BH-FDR = 8.74 × 10⁻4) وتطور الجهاز العصبي المركزي (BH-FDR = 0.0364)، بينما أظهرت مجموعة الإجماع لـ CHMP6 إثراءً لالتصاق الخلايا (BH-FDR = 0.0075). ولم يصل أي مصطلح من أنطولوجيا الجينات إلى قيمة BH-FDR < 0.05 بالنسبة لمجموعة الإجماع لـ ATG7 المكونة من ثلاثة جينات.
توافر البيانات:
تتوفر مجموعات البيانات الترانسكريبتومية العامة من مستودع GEO تحت أرقام الوصول GSE196533 وGSE4290 وGSE116520 وGSE131928. كما تم إيداع الإحصائيات الملخصة لنتائج GBM تحت وصول مقيد في الأرشيف الأوروبي للجينوم والفينوم (EGA)، مجموعة البيانات EGAD00010001657 عبر الرابط (https://ega-archive.org/datasets/EGAD00010001657). وتتم إدارة الوصول من قبل لجنة الوصول إلى البيانات المسؤولة، ويتطلب ذلك تقديم طلب معتمد واتفاقية وصول إلى البيانات. وبموجب الاتفاقية المعمول بها، لا يُصرح للمؤلفين بإعادة توزيع الملفات أو إيداعها في مستودع عام. وتتوفر البيانات الملخصة لـ eQTL من كونسورتيوم eQTLGen وGTEx وفقاً لشروط الوصول والاستخدام الخاصة بكل منهما. أما النصوص البرمجية للتحليل التي تدعم هذه الدراسة فهي متوفرة كـ ملف الترميز التكميلي 1 و ملف البرمجة التكميلي 2.
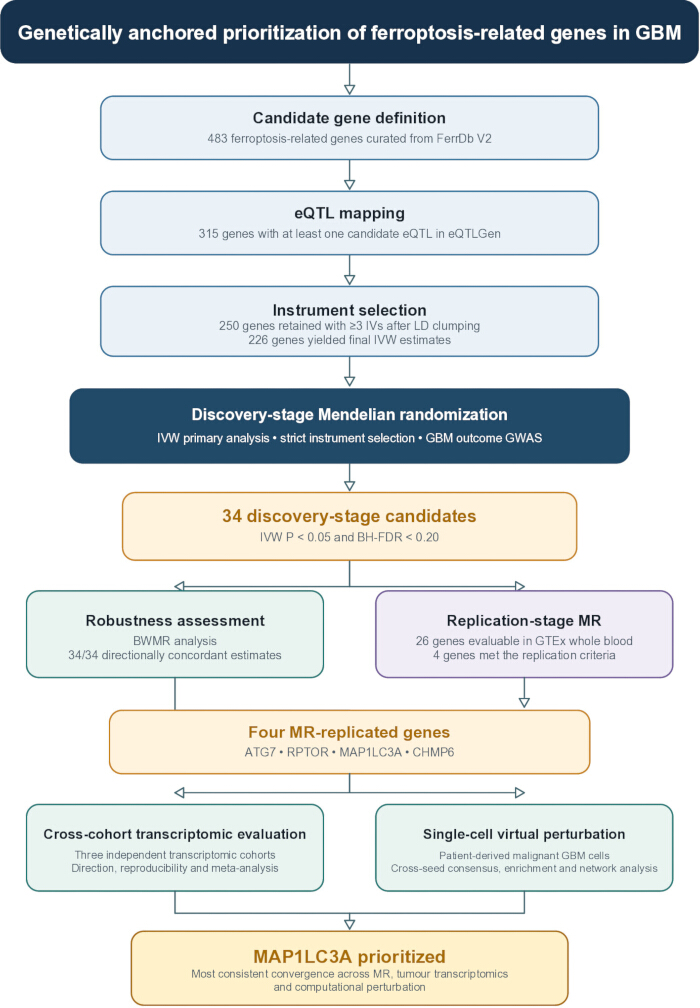
الشكل 1: تصميم الدراسة وإطار تكامل الأدلة لتحديد أولويات الجينات المرتبطة بـ ferroptosis في الورم الأرومي الدبقي بناءً على الأسس الجينية. تم تعيين الجينات المرتبطة بـ ferroptosis المنسقة من FerrDb V2 إلى eQTLGen، وفحصها بحثاً عن أدوات cis-expression quantitative trait locus (cis-eQTL) مستقلة، وتقييمها بواسطة العشوائية المندلية (MR) في مرحلة الاكتشاف. من بين 483 جيناً منسقاً، امتلك 315 جيناً على الأقل cis-eQTL مرشحاً واحداً، واحتفظ 250 جيناً بثلاث أدوات مستقلة على الأقل بعد تجميع عدم الاتزان الارتباطي (LD)، وأعطى 226 جيناً تقديرات inverse-variance weighted (IVW) صالحة بعد البحث عن متغيرات النتائج ومواءمة الأليلات. استوفت أربعة وثلاثون جيناً معايير مرحلة الاكتشاف، وبعد ذلك استُخدمت العشوائية المندلية الموزونة البايزية (BWMR) لتقييم المتانة. لاحقاً، تمت تقييم ستة وعشرين جيناً في مرحلة تكرار MR باستخدام cis-eQTLs للدم الكامل من GTEx V10. استوفت أربعة جينات (ATG7 وRPTOR وMAP1LC3A وCHMP6) معايير التكرار وتم تقييمها بشكل إضافي عبر ثلاث مجموعات نسخية مستقلة وعن طريق الاضطراب الافتراضي في خلايا خبيثة مشتقة من المرضى. أدى تكامل هذه التحليلات المتكاملة إلى تحديد MAP1LC3A كأولوية لمزيد من الاستقصاء. BWMR = العشوائية المندلية الموزونة البايزية؛ eQTL = locus الكمي لسمة التعبير؛ IVW = الموزون بالتباين العكسي؛ LD = عدم الاتزان الارتباطي؛ MR = العشوائية المندلية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
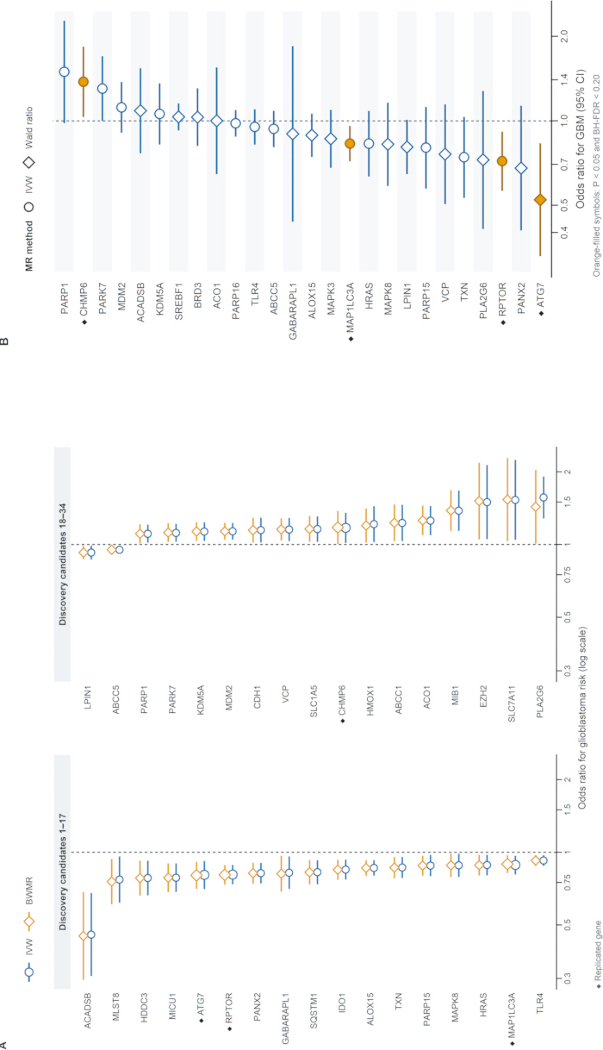
الشكل ٢: متانة مرحلة الاكتشاف والتكرار المستقل لتأثيرات الجينات المرتبطة بالموت الخلوي الحديدي والمتوقعة جينياً على خطر الإصابة بالورم الأرومي الدبقي. (Aمخططات غابة مقترنة تقارن بين تقديرات طريقة وزن التباين العكسي (IVW) والتحليل العشوائي المندلي الموزون بايزياً (BWMR) لـ 34 جيناً استوفت معايير مرحلة الاكتشاف الخاصة بطريقة وزن التباين العكسي (IVW) P < 0.05 ومعدل الاكتشافات الكاذبة لبنجاميني-هوشبيرج (BH-FDR) < تشير المربعات التي تسبق أسماء الجينات إلى الجينات التي تم دعمها لاحقاً في تحليل التكرار المستقل. بينما يحدد المثلث جين LPIN1، الذي أظهرت تقديرات IVW وBWMR اتجاهات تأثير متضاربة. (Bمخطط غابة (Forest plot) للجينات الـ 26 التي تم تقييمها في مجموعة بيانات مرحلة التكرار. تظهر تقديرات طريقة الوزن العكسي (IVW) للجينات التي تحتوي على أداتين على الأقل، بينما تظهر تقديرات نسبة والد (Wald-ratio) للجينات التي تحتوي على أداة واحدة. تحدد الرموز المعبأة باللون البرتقالي الجينات ATG7 وRPTOR وMAP1LC3A وCHMP6، والتي استوفت معايير التكرار.P < 0.05 وBH-FDR < 0.20). وتمثل النقاط والخطوط الأفقية نسب الأرجحية (ORs) وفترات الثقة (CIs) بنسبة 95% على التوالي؛ ويشير الخط المتقطع الرأسي إلى أن نسبة الأرجحية تساوي 1. وتُعرض نسب الأرجحية على مقياس لوغاريتمي. GBM = الورم الأرومي الدبقي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
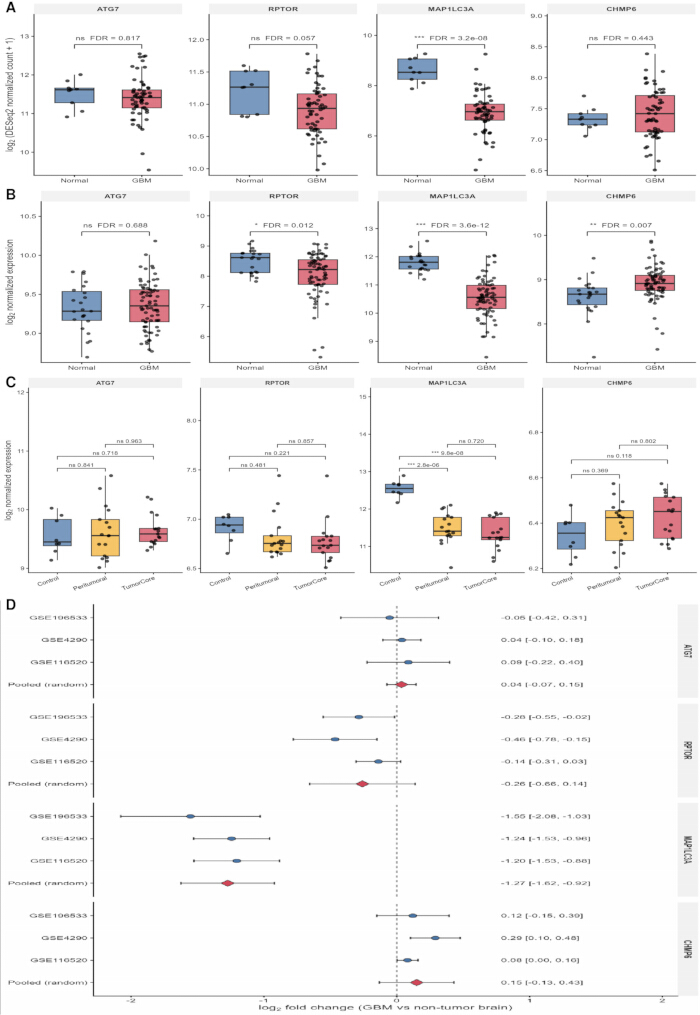
الشكل 3: تقييم ترانسكريبتومي عبر عدة مجموعات للجينات الأربعة التي تم تكرارها بواسطة MR. تعبير ATG7 و RPTOR و MAP1LC3A و CHMP6 في GSE196533 (61 عينة ورم دبقي من الدرجة 4 مصنفة على أنها GBM في البيانات الوصفية المودعة وتسع عينات دماغ غير ورمية)؛ (A) GSE4290 (77 عينة GBM و 23 عينة دماغ غير ورمية)؛ (B) و GSE116520 (17 عينة من قلب الورم، و 17 عينة من محيط الورم مطابقة للمريض، وثماني عينات ضابطة غير ورمية)؛ (C) تشير الصناديق إلى الوسيط والمدى الربيعي (IQR)، وتمتد الشوارب إلى 1.5 × IQR، وتمثل النقاط العينات الفردية. (D) تغيرات log₂ الطي الخاصة بالدراسة وتحليل ميتا للتأثيرات العشوائية لمقارنة أنسجة الورم أو قلب الورم مع أنسجة الدماغ غير الورمية. تشير النقاط والخطوط الأفقية إلى التقديرات الخاصة بالدراسة وفترات الثقة 95%، بينما تمثل المعينات تقديرات مجمعة لأقصى احتمالية مقيدة مع استنتاج Hartung–Knapp. تشير القيم الموجبة إلى تعبير أعلى في أنسجة الورم. FDR = معدل الاكتشاف الكاذب؛ GBM = الورم الدبقي متعدد الأشكال؛ MR = العشوائية المندلية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
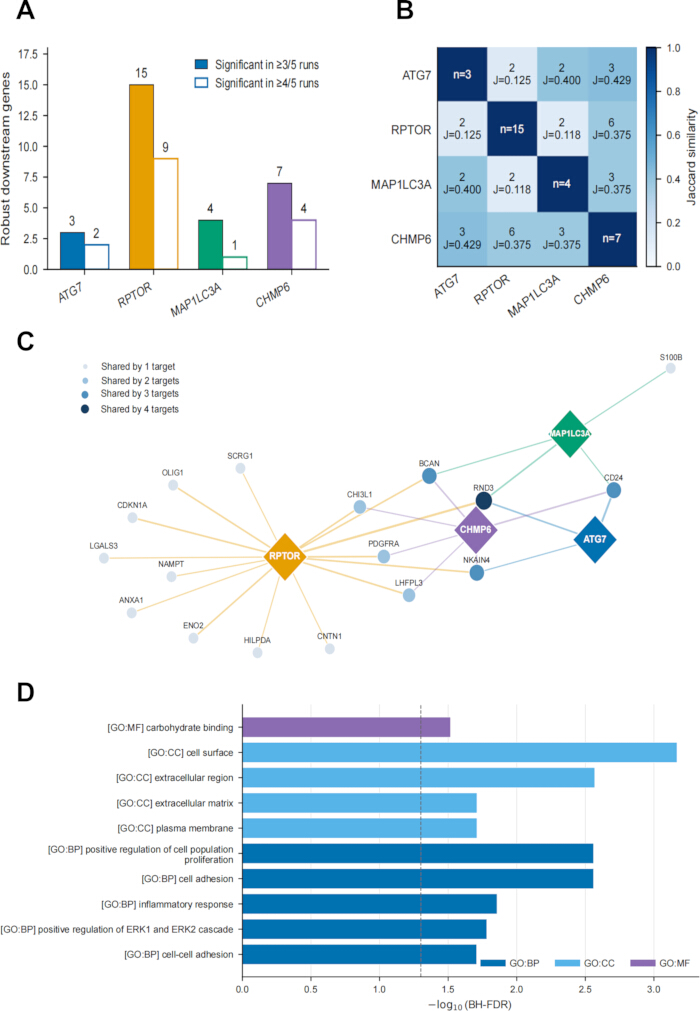
الشكل 4: التوافق عبر البذور والتقارب الوظيفي لعمليات التعطيل الافتراضية أحادية الخلية في خلايا الورم الأرومي الدبقي الخبيث. (A) أعداد الجينات المصبّية القوية التي تم تحديدها لكل هدف باستخدام معيار الأهمية المحدد مسبقاً في ثلاث من أصل خمس عمليات تشغيل على الأقل، ومعيار الحساسية الأكثر صرامة المتمثل في أربع من أصل خمس عمليات تشغيل. (B) التداخل الزوجي للجينات المصبّية القوية؛ حيث تعرض الخلايا أعداد التداخل ومعاملات تشابه Jaccard. (C) شبكة ثنائية تربط أهداف التعطيل الافتراضي الأربعة (المعينات) بالجينات المصبّية القوية (الدوائر). تشير ألوان الحواف إلى الهدف المضطرب، بينما يشير حجم الدائرة وكثافة لونها إلى عدد الأهداف التي تشترك في كل استجابة مصبّية. تمثل الحواف الارتباطات بين الاضطرابات الحسابية القابلة للتكرار بدلاً من التفاعلات الجزيئية المباشرة. (D) إثراء أنطولوجيا الجينات (Gene Ontology) ذو الدلالة لمجموعة التوافق المجمعة المكونة من 17 جيناً. يمثل طول الشريط قيمة −log10(BH-FDR)، ويشير الخط المتقطع إلى عتبة الأهمية (BH-FDR = 0.05)، وتشير الألوان إلى العملية البيولوجية (BP)، والمكون الخلوي (CC)، والوظيفة الجزيئية (MF). استخدم تحليل الإثراء الوظيفي خلفية الشبكة التنظيمية المتوازنة للمرضى المكونة من 1,004 جينات. لم يتبقَّ أي مسار من KEGG أو Reactome ذا دلالة إحصائية بعد تصحيح Benjamini–Hochberg. الاختصارات: BH-FDR = معدل الاكتشاف الخاطئ لـ Benjamini–Hochberg؛ BP = العملية البيولوجية؛ CC = المكون الخلوي؛ GO = أنطولوجيا الجينات؛ KEGG = موسوعة كيوتو للجينات والجينومات؛ MF = الوظيفة الجزيئية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الجدول 1: نظرة عامة على مصادر البيانات وأدوارها التحليلية في الدراسة. تمثل أعداد العينات الملاحظات المضمنة في التحليلات الحالية. BH-FDR = معدل الاكتشاف الكاذب لبنجاميني-هوكبرج؛ cis-eQTL = موقع سمات كمية للتعبير الجيني في الموقع نفسه؛ EGA = أرشيف الجينوم والنمط الظاهري الأوروبي؛ GBM = الورم الأرومي الدبقي؛ GTEx = مشروع التعبير الجيني في الأنسجة؛ GWAS = دراسة الارتباط على مستوى الجينوم؛ IV = متغير أدواتي؛ MR = العشوائية المندلية؛ RNA-seq = تسلسل الحمض النووي الريبوزي. يرجى النقر هنا لتحميل هذا الجدول.
الجدول 2: الأدلة النسخية عبر المجموعات لأربعة جينات تم تكرارها بواسطة العشوائية المندلية (MR). تمثل القيم تغيرات الطي log₂ لأنسجة GBM أو لب الورم بالنسبة لأنسجة الدماغ غير الورمية. تم الحصول على التقديرات المجمعة باستخدام نماذج التأثيرات العشوائية ذات الاحتمالية القصوى المقيدة مع استدلال Hartung–Knapp. CI = فاصل الثقة؛ FDR = معدل الاكتشاف الكاذب. يرجى النقر هنا لتحميل هذا الجدول.
الشكل الإضافي 1: تحليلات الحساسية للعشوائية المندلية في مرحلة الاكتشاف لأربعة جينات مكررة. يتم عرض كل من MAP1LC3A وATG7 وRPTOR وCHMP6 على النحو التالي: (A) تحليل استبعاد واحد (leave-one-out)؛ (B) مخطط تشتت لمقارنة الطرق؛ و(C) مخطط القمع (funnel plot).يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 2: مخططات تشخيصية للعشوائية المندلية في مرحلة التكرار للجينات الثلاثة المكررة ذات الأدوات المتعددة. يتم عرض كل من MAP1LC3A و RPTOR و CHMP6 على النحو التالي: (أ) مخطط تشتت لمقارنة الطرق؛ و (ب) مخطط قمعي. تم تقدير ATG7 باستخدام نسبة Wald لأداة واحدة، وبالتالي لم يكن مؤهلاً لمخططات التشخيص متعددة الأدوات.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 3: تحليل المكونات الرئيسية لثلاث مجموعات نسخ ترانسكريبتومية مستقلة. (أ) مجموعة تسلسل الحمض النووي الريبي RNA-sequencing رقم GSE196533. (ب) مجموعة Affymetrix GPL570 رقم GSE4290. (ج) مجموعة Illumina GPL10558 رقم GSE116520. تم إجراء تحليل المكونات الرئيسية باستخدام 500 جين أو مسبار ذات أكبر تباين داخل المجموعة. تمثل كل نقطة عينة بيولوجية؛ وتشير الألوان إلى مجموعات الأنسجة؛ وتوضح تسميات المحاور نسبة التباين المفسر بواسطة كل مكون رئيسي.يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 4: إمكانية الكشف عن الجينات الأربعة المكررة عبر MR في خلايا GBM الخبيثة لدى البالغين. (A) معدلات الكشف الإجمالية لـ ATG7 وRPTOR وMAP1LC3A وCHMP6 من بين 4,916 خلية خبيثة من 20 ورماً من أورام GBM ذات النمط البري لـ IDH لدى البالغين في GSE131928/SCP393. (B) معدلات الكشف على مستوى المريض للجينات نفسها. يشير اللون إلى النسبة المئوية للخلايا الخبيثة التي يكون فيها TPM > 0.يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 5: قابلية تكرار الإشارات النهائية لعملية التعطيل الافتراضي عبر بذور عشوائية مختلفة. (أ) عدد الجينات النهائية ذات الدلالة الإحصائية بناءً على معدل الاكتشاف الكاذب (BH-FDR) والتي تم تحديدها عبر خمس عمليات تشغيل مستقلة لكل هدف. تمثل النقاط البذور العشوائية، وتشير الخطوط الأفقية إلى الوسيط. (ب) الجينات النهائية ذات الدلالة الإحصائية في ثلاث عمليات تشغيل على الأقل من أصل خمس. يوضح المحور السيني عدد عمليات التشغيل ذات الدلالة، وتحدد الألوان الهدف الذي تم اضطرابه، ويمثل حجم النقطة وسيط إحصائية Z لبرنامج scTenifoldKnk. تم استبعاد الجين الهدف نفسه.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 6: تحليلات حساسية الإثراء المجمعة والمشتركة وذات العتبة الصارمة. الإثراء الوظيفي لـ (A) الإجماع المجمع المحدد بالدلالة في ثلاث مرات على الأقل من أصل خمس عمليات تشغيل؛ (B) الجينات المشتركة بين هدفين على الأقل وفقاً لمعيار الثلاثة-من-خمسة؛ (C) الإجماع الصارم المجمع المحدد بالدلالة في أربع مرات على الأقل من أصل خمس عمليات تشغيل؛ و (D) الجينات المشتركة بين هدفين على الأقل وفقاً لمعيار الأربعة-من-خمسة. يوضح المحور السيني −log₁₀(nominal P)، ويعكس حجم النقاط عدد التداخلات، وتشير الألوان إلى قاعدة بيانات التعليقات التوضيحية. وصلت النقاط الممتلئة إلى BH-FDR < 0.05، بينما تشير النقاط المفرغة إلى مصطلحات استكشافية ذات nominal P < 0.05. تم استخدام خلفية شبكة تنظيمية مكونة من 1,004 جين طوال فترة التحليل.يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 7: الإثراء الوظيفي المحدد للهدف لاستجابات التعطيل الافتراضي القوية. إثراء الجينات القوية في المصب بعد التعطيل الافتراضي لـ (A) ATG7؛ (B) RPTOR؛ (C) MAP1LC3A؛ و (D) CHMP6. يوضح المحور السيني −log₁₀(nominal P)، ويعكس حجم النقطة عدد التداخلات، وتدل الألوان على GO: BP أو GO: CC أو GO: MF أو KEGG أو Reactome. وصلت النقاط الممتلئة إلى BH-FDR < 0.05، بينما تشير النقاط المفتوحة إلى المصطلحات الاستكشافية ذات nominal P < 0.05. عملت الـ 1,004 جينات التي تشكل الشبكة التنظيمية المتوازنة للمرضى كخلفية للإثراء.يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 1: الجداول التكميلية الداعمة لتحديد الأولويات متعدد المراحل للجينات المرتبطة بموت الخلايا الحديدي والمصاحبة للقابلية للإصابة بالورم الأرومي الدبقي. يحتوي هذا الملف التكميلي على جميع الجداول التكميلية الداعمة للتحليلات الجينية والنسخية وتحليلات الخلية الواحدة. ويتضمن فحص واختيار الجينات والأدوات الجينية المرتبطة بموت الخلايا الحديدي؛ والنتائج الكاملة لمرحلتي الاكتشاف والتكرار للعشوائية المندلية إلى جانب تحليلات الحساسية، بما في ذلك تقييمات التباين وتعدد الأنماط الظاهرية الأفقي وتقييمات MR-PRESSO؛ وخصائص المجموعة، وتحليلات التعبير التفاضلي، والتحليل التلوي عبر المجموعات للجينات المحددة جينياً؛ بالإضافة إلى تحليلات التعطيل الافتراضي للجينات في الخلية الواحدة، وتقييمات إعادة الإنتاج، وتحليلات الإثراء الوظيفي، ونتائج الشبكة المشتركة.يرجى النقر هنا لتحميل هذا الملف.
ملف البرمجة التكميلي 1: برامج R و Python المستخدمة في تحليلات العشوائية المندلية، والتحليل النسخي، والتعطيل الافتراضي للخلية الواحدة، والإثراء الوظيفي، وتحليلات الشبكات الموضحة في هذه الدراسة.يرجى النقر هنا لتحميل هذا الملف.
ملف البرمجة التكميلي 2: نصوص التحليل الداعمة، وروتينات الرسم البياني، وأدوات سير العمل المستخدمة لإنتاج نتائج الدراسة والأشكال والمخرجات التكميلية.يرجى النقر هنا لتحميل هذا الملف.
المناقشة
دمجت هذه الدراسة بين الارتباط الجيني، والعشوائية المندلية (MR) في مرحلة التكرار، والترانسكريبتوميات الورمية، والنمذجة أحادية الخلية المشتقة من المرضى لتحديد أولويات الجينات المرتبطة بالموت الحديدي (ferroptosis) والمتعلقة بالقابلية للإصابة بالورم الأرومي الدبقي (GBM). وأدى فحص 483 جينًا منتقى مقابل دراسة ارتباط جينومية واسعة النطاق (GWAS) لـ GBM شملت 6,183 حالة و18,169 ضابطًا إلى تحديد 34 مرشحًا في مرحلة الاكتشاف، وقد تم دعم أربعة منهم—وهي ATG7 وRPTOR وMAP1LC3A وCHMP6—في تحليل التكرار باستخدام مورد مستقل لمواقع السمات الكمية للتعبير الجيني (eQTL). وأصبحت الأدلة أكثر انتقائية تدريجيًا بعد التحليلات الجينية؛ حيث ظهر انخفاض مستمر في تعبير MAP1LC3A عبر ثلاث مجموعات أورام مستقلة وظل ذا دلالة إحصائية في التحليل التلوي عبر المجموعات. وقد أكمل نمط التعبير الورمي هذا الارتباط الوقائي الملحوظ في تحليلات العشوائية المندلية، رغم أن النهجين يتناولان جوانب متميزة من بيولوجيا المرض. وأظهر RPTOR وCHMP6 أدلة ترانسكريبتومية متسقة اتجاهيًا ولكنها أقل حسمًا، بينما افتقر ATG7 إلى دعم قابل للتكرار على مستوى الأنسجة. كما كشف التعطيل الجيني الافتراضي (Virtual knockout) عن استجابات ترنسكريبتومية خاصة بكل هدف، ولكنها متداخلة جزئيًا في الخلايا الخبيثة. وبشكل جماعي، قامت هذه الطبقات التحليلية المتسلسلة بتنقيح نتائج العشوائية المندلية الأولية من خلال تمييز المرشحين بدرجات متفاوتة من الدعم ذي الصلة بالمرض، حيث برز MAP1LC3A كأقوى مرشح إجمالي.
تم استخلاص جزء كبير من الأدلة البشرية الحالية التي تربط الموت الحديدي (ferroptosis) بالورم الدبقي من دراسات التعبير الورمي. وقد حددت تحليلات TCGA وCGGA ومجموعات عامة أخرى بشكل متكرر سمات مرتبطة بالموت الحديدي ترتبط بالبقاء على قيد الحياة، ودرجة الورم، والخصائص الجزيئية، والسمات المناعية9,27. وبالرغم من أن هذه الدراسات أثبتت الأهمية السريرية للبرامج النسخية المرتبطة بالموت الحديدي، إلا أن ملفات التعبير التي تم الحصول عليها من أورام قائمة لا يمكنها التمييز بين الجينات المرتبطة بالقابلية للإصابة والتغيرات النسخية التي تنشأ أثناء تطور الورم أو تعكس الاختلافات في التركيب الخلوي. وتقدم التحليلات الجينية منظوراً تكميلياً؛ حيث قام Robinson وزملاؤه بدمج بيانات GWAS للورم الدبقي مع مجموعات بيانات eQTL للدماغ والدم الكامل باستخدام MR والتوطين المشترك (colocalization)، مما أعطى الأولوية لجينات القابلية للإصابة المفترضة ذات التأثيرات المعتمدة على النسيج، وأظهر توافقاً محدوداً بين التقديرات المشتقة من الدم والدماغ11. وفي الآونة الأخيرة، قامت دراسة MR تكاملية قائمة على eQTL وpQTL بدمج الأدلة الجينية مع تحليلات التعبير التفاضلي والتوطين المشترك لإعطاء الأولوية لـ GPX7 وCXCL10 لمزيد من التقييم في GBM12. وفي المقابل، بدأت الدراسة الحالية بمجموعة جينات محددة مسبقاً مرتبطة بالموت الحديدي، وقيمت المرشحين المحددين جينياً من خلال MR في مرحلة التكرار، وعلم النسخ الورمي (transcriptomics)، والاضطراب الحسابي المحلول خلوياً. إن الصقل التدريجي من 34 ارتباطاً في مرحلة الاكتشاف إلى أربعة جينات مكررة، وصولاً في النهاية إلى MAP1LC3A باعتباره الجين الوحيد الذي أظهر تعبيراً تفاضلياً ذا دلالة إحصائية عبر المجموعات، يوضح القيمة التمييزية لدمج عدة مناهج تحليلية تكميلية. ومن المهم الإشارة إلى أن تحليلات علم النسخ لم تكن تهدف إلى التحقق من صحة الأدوات الجينية المشتقة من الدم، بل لتحديد ما إذا كانت الجينات المحددة جينياً تظهر أيضاً أنماط تعبير قابلة للتكرار وذات صلة بالمرض.
يثير MAP1LC3A اهتماماً خاصاً لأن النتائج الحالية توسع من توصيفه السابق كعلامة مرتبطة بالأورام وعلامة إنذارية. وقد دمجت دراسة معلوماتية حيوية سابقة متعددة المجموعات MAP1LC3A ضمن بصمة مكونة من ستة جينات مرتبطة ببقاء مرضى GBM ونكس المرض، كما أبلغت عن تغير في مثيلة MAP1LC3A، رغم أن مساهمته في القابلية للإصابة بالمرض ظلت غير محددة28. وهنا، ارتبط التعبير المتوقع جينياً المرتفع لـ MAP1LC3A باستمرار بانخفاض القابلية للإصابة بـ GBM في كلتا مرحلتي MR. علاوة على ذلك، انخفض تعبير MAP1LC3A بشكل قابل للتكرار عبر ثلاث مجموعات أورام مستقلة على الرغم من الاختلافات في منصات التعبير وتكوينات العينات والمنهجيات التحليلية، وأظهر تقدير التحليل التلوي المجمع عدم وجود تباين ملموس بين الدراسات. وعلى الرغم من أن هذه النتائج لا تثبت أن انخفاض تعبير MAP1LC3A يبدأ الإصابة بـ GBM، إلا أنها توفر دليلاً أقوى يربط الجين بالقابلية للإصابة بالمرض مقارنة بتحليلات التعبير التفاضلي للأورام وحدها. يشفر MAP1LC3A نظائر LC3A ضمن عائلة بروتين ATG8 في الثدييات. وقد أثبت Bai وزملاؤه أن المتغير 1 من LC3A يخضع لاقتران الفوسفاتيديل إيثانولامين لإنتاج LC3A-II ويتمركز في الأجسام البلعمية أثناء البلعمة الذاتية المستحثة29. كما تبين أن turnover الفيريتين البلعمي يؤثر على الحساسية تجاه الموت الحديدي (ferroptosis) في خلايا GBM، بما في ذلك في حالات الحرمان من السيستين وفي النماذج المعتمدة على ALDH1A330,31. ومع ذلك، فحصت هذه الدراسات بشكل أساسي LC3-II الكلي أو LC3B بدلاً من MAP1LC3A تحديداً. وفي التحليلات الحالية للخلية الواحدة، أدى الاضطراب الافتراضي لـ MAP1LC3A إلى استجابات لاحقة قابلة للتكرار غنية بالعمليات المرتبطة بالتصاق الخلايا. ومجتمعة، تحدد هذه الملاحظات MAP1LC3A كمرشح مركز لاستقصاء كيفية تقاطع التنظيم المرتبط بالبلعمة الذاتية، والحساسية للموت الحديدي، وسلوك الخلايا الخبيثة في GBM.
تلقّت الجينات المتبقية التي تم تكرار نتائجها عبر التوزيع العشوائي المندلي (MR) مستويات متفاوتة من الدعم من التحليلات اللاحقة. ارتبط التعبير الجيني المتوقع لـ RPTOR بمستويات أعلى مع انخفاض القابلية للإصابة بورم الأرومة الدبقية (GBM) في كلتا مرحلتي MR، وكان تعبيره منخفضًا باستمرار عبر جميع مجموعات الأورام الثلاث، على الرغم من أن التقدير المجمع لم يصل إلى دلالة إحصائية. أنتج التعطيل الافتراضي لـ RPTOR أكبر مجموعة من التغيرات النسخية المتكررة في المصب، مع إثراء يشمل إشارات ERK، والاستجابات الالتهابية، وتكاثر الخلايا، والتصاق الخلايا. ومع أن هذه النتائج تتوافق مع الدور المعروف لـ RPTOR كركيزة لـ mTORC1، إلا أنه لا ينبغي تفسير حجم الاستجابة النسخية على أنه دليل على تأثير سببي أقوى32. وبالمثل، أظهر CHMP6 ارتباطات MR متوافقة عبر كلتا المرحلتين، حيث ارتبط التعبير المتوقع جينيًا الأعلى بزيادة القابلية للإصابة بورم GBM. وعلى الرغم من أن تعبير CHMP6 كان مرتفعًا باستمرار عبر جميع مجموعات الأورام الثلاث، إلا أن فاصل الثقة المجمع شمل القيمة الصفرية، وكان التباين بين الدراسات متوسطًا. وتوفر الأدلة التجريبية التي تثبت أن إصلاح الغشاء المعتمد على ESCRT-III وCHMP6 يثبط الموت الخلوي الحديدي (ferroptotic cell death) سياقًا ميكانيكيًا معقولًا، رغم أن هذه النتائج تم الحصول عليها خارج نماذج GBM33. في المقابل، أظهر ATG7 ارتباطًا جينيًا وقائيًا مكررًا ولكن دون نمط تعبير ورمي قابل للتكرار. حدد التعطيل الافتراضي ثلاثة جينات قوية فقط في المصب، ولم تظل أي فئة وظيفية ذات دلالة إحصائية بعد تصحيح الاختبارات المتعددة. أشارت الدراسات التجريبية السابقة إلى تورط البلعمة الذاتية المعتمدة على ATG7 في تكيف GBM والاستجابة للعلاج34,35، ولكن هذه الملاحظات لا تحسم ضعف الدعم النسبي الملاحظ عبر المنصات المختلفة هنا. وبناءً على ذلك، يظل RPTOR وCHMP6 وATG7 مرشحين ثانويين محتملين، بينما أظهر MAP1LC3A أقوى تقارب عبر التحليلات الجينية، والنسخية، وتحليلات الاضطراب الحسابية.
لم تحدد تحليلات الاضطراب الافتراضية مساراً واحداً في المصب تشترك فيه جميع الجينات الأربعة ذات الأولوية. وبدلاً من ذلك، أظهرت الاستجابات النسخية القابلة للتكرار تداخلاً جزئياً فقط، حيث كان RND3 هو الجين الوحيد في المصب المشترك بين الشبكات الأربع المحددة للأهداف. وكان أوضح تقارب وظيفي يتمثل في التصاق الخلايا والعمليات خارج الخلية أو على سطح الخلية، وظل إثراء التصاق الخلايا ذا دلالة إحصائية في ظل معيار البذر المتقاطع الأكثر صرامة. ولم يظل أي مسار من مسارات KEGG أو Reactome ذا دلالة إحصائية بعد تصحيح الاختبارات المتعددة. وتجدر الإشارة إلى هذه الملاحظة لأنه على الرغم من اختيار الجينات المرشحة من مجموعة منسقة من الجينات المرتبطة بـ ferroptosis، إلا أن تأثيراتها المتوقعة في المصب في خلايا GBM الخبيثة لم تكن تهيمن عليها مسارات ferroptosis التقليدية. بل قد يشمل مساهمتها في القابلية للإصابة بـ GBM عمليات خلوية أوسع تعمل ضمنها الآليات المرتبطة بـ ferroptosis. ولا تثبت التحليلات الحالية وجود آلية جزيئية مشتركة أو تحدد RND3 كوسيط مسبب، بل تسلط الضوء على مجموعة محدودة من برامج الخلايا الخبيثة، لاسيما تلك المتعلقة بالتصاق الخلايا، والتي تستحق استقصاءً تجريبياً مستقبلياً.
يجب تفسير هذه الدراسة على أنها إطار عمل لتحديد الأولويات على مراحل، بدلاً من كونها تعييناً نهائياً للجينات المسببة. لم تُعتبر أي طبقة تحليلية فردية حاسمة؛ وبدلاً من ذلك، تم تقييم ارتباطات مرحلة الاكتشاف تتابعياً باستخدام طريقة المندلية العشوائية ثنائية المتغيرات (BWMR)، ومورد eQTL مستقل، وثلاث مجموعات من بيانات النسخ، ونمذجة تنظيمية للخلايا الخبيثة المشتقة من المرضى. كما يجب الإقرار بوجود عدة قيود؛ أولاً، إن عتبة الاكتشاف الخاصة بمعدل الاكتشاف الخاطئ المصحح بطريقة بنجاميني-هوخ (BH-FDR) التي بلغت < كان الهدف من القيمة 0.20 هو فحص المرشحين بدلاً من الاستدلال التأكيدي، وكان 26 فقط من أصل 34 مرشحاً في مرحلة الاكتشاف قابلاً للتقييم في عملية التكرار. ثانياً، تم تمثيل العديد من الجينات بعدد قليل نسبياً من الأدوات الجينية، ولم يتم إجراء تحليلات رسمية للقوة على مستوى الجينات؛ وبناءً على ذلك، يجب تفسير الارتباطات الضعيفة أو المعدومة بحذر. وقد أدى عتبة الأهلية المكونة من ثلاث أدوات إلى زيادة التغطية الجينية، ولكنها حدّت من نطاق واستقرار تحليلات الحساسية للجينات التي تم تمثيلها بثلاث أو أربع متغيرات فقط. وعلى الرغم من أن جميع الأدوات المتبقية في مرحلة الاكتشاف قد تجاوزت قيمة F التقليدية > وتم تقييم 10 عتبات ومرشحات بشكل إضافي باستخدام طريقة التراجع الموزون بكثافة المنحنى (BWMR) والتكرار المستقل، إلا أن هذه الضمانات لا تعوض بشكل كامل عن ندرة الأدوات؛ لذا يجب أن تظل هذه التقديرات استكشافية. ثالثاً، استُمد كلا موردي مواقع السمات الكمية للتعبير الجيني (eQTL) من الدم الكامل، وقد لا تعكس التأثيرات التنظيمية الخاصة بالدماغ أو الأورام بدقة. رابعاً، افتقرت الإحصاءات الملخصة المتاحة لدراسة الارتباط الجينومي الكامل (GWAS) لورم الأرومة الدبقية المتعدد الأشكال (GBM) إلى المعلومات المطلوبة لاختبار اتجاهية Steiger وتحليلات التوطن المشترك الرسمية. وبناءً على ذلك، لا يزال من غير المؤكد ما إذا كانت إشارات الارتباط بين eQTL وGBM في كل موقع ناشئة عن نفس المتغير المسبب أو عن متغيرات متميزة في حالة عدم توازن الارتباط. وعلى الرغم من أن طريقة BWMR مصممة لاستيعاب تعدد الأنماط الظاهرية الأفقي واسع النطاق والأدوات الشاذة، فإن التوافق بين طريقة الوزن العكسي (IVW) وطريقة BWMR لا يمكن أن يستبعد تعدد الأنماط الظاهرية المتبقي أو يحل محل تحليلات التوطن المشترك الرسمية. بالإضافة إلى ذلك، قيمت المجموعات النسخية أوراماً قائمة بدلاً من القابلية للإصابة بالمرض، وتكونت إحدى المجموعات من عينات ورم دبقي من الدرجة الرابعة بدلاً من أن تكون مقتصرة على ورم الأرومة الدبقية المتعدد الأشكال من النوع البري لـ IDH. وأخيراً، اقتصرت تحليلات الخلية الواحدة على الخلايا الخبيثة من مجموعة بيانات واحدة، وتمت نمذجة الاضطراب التنظيمي حوسبياً وليس تجريبياً؛ ولم تقيم الخلايا غير الخبيثة داخل البيئة الدقيقة للورم أو تعيد إنتاج الاضطراب الجيني مباشرة في المختبر أو في الجسم الحي. وعليه، فإن المتغيرات المسببة الكامنة، والآليات الخاصة بنوع الخلية، والنتائج البيولوجية لا تزال بحاجة إلى تحديد.
من بين الجينات المكررة الأربعة، أظهر جين MAP1LC3A الدعم الأكثر اتساقاً عبر التحليلات الجينية، والترانسكريبتومية، وتحليلات الخلية الواحدة. أما الجينات RPTOR وCHMP6 وATG7 فقد احتفظت بالأدلة المستمدة من تحليلات المندلية العشوائية (MR) ثنائية المرحلة، ولكنها أظهرت دعماً أقل اتساقاً في التحليلات الترانسكريبتومية وتحليلات الاضطراب اللاحقة. وبناءً على ذلك، يجب اعتبار MAP1LC3A مرشحاً ذا أولوية لمزيد من الاستقصاء بدلاً من اعتباره جيناً سببياً مؤكداً أو هدفاً علاجياً. ويجب أن تحدد الدراسات المستقبلية أولاً ما إذا كانت إشارات الارتباط بين eQTL وGBM متوضعة في نفس الموقع (colocalize) باستخدام مجموعات بيانات كاملة على مستوى الموقع الجيني، جنباً إلى جنب مع الموارد التنظيمية الخاصة بالدماغ أو الأورام. ثم يمكن لدراسات الاضطراب ثنائية الاتجاه اللاحقة في نماذج GBM المشتقة من المرضى فحص الحساسية تجاه الموت الحديدي (ferroptosis)، وبيروكسيد الدهون، وبقاء الخلية، والبرامج النسخية المرتبطة بالالتصاق والتي حددتها التحليلات الحاسوبية. ستكون هذه التجارب ضرورية للتمييز بين التأثيرات على القابلية الوراثية للإصابة بالمرض وتلك التي تؤثر على سلوك الخلايا الورمية القائمة، ولاختبار الارتباطات التقاربية التي حددتها هذه الدراسة بشكل مباشر.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
يقر المؤلفون بفضل فريق علم الجينوم السرطاني في معهد أبحاث السرطان لتوفير إمكانية الوصول إلى الإحصائيات الملخصة لدراسة الارتباط الجينومي الكامل (GWAS) للورم الدبقي من خلال أرشيف الجينوم والنمط الظاهري الأوروبي (مجموعة البيانات EGAD00010001657). وقد تم دعم التوليد الأصلي لهذه البيانات من قبل مؤسسة أبحاث السرطان في المملكة المتحدة (Cancer Research UK)، بما في ذلك صندوق بوبي مور (Bobby Moore Fund)، وصندوق ويلكوم (Wellcome Trust)، وصندوق دي جي فيلدينج للأبحاث الطبية (DJ Fielding Medical Research Trust) برقم (C1298/A8362).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| معدل الأيض الأساسي للوزن (BWMR) | حزمة R | معدل الأيض الأساسي الموزون (BWMR) | العشوائية المندلية المرجحة وفق المنهج البيزي |
| DESeq2 | Bioconductor | الإصدار 1.46.0 | تحليل التعبير التفاضلي عبر تسلسل الحمض النووي الريبوزي (RNA-sequencing) |
| FerrDb V2 | FerrDb | الإصدار ٢ | مصدر 483 جيناً منسقاً مرتبطاً بالموت الخلوي الحديدي |
| مصفوفة مجهرية شاملة للورم الأرومي الدبقي | قاعدة بيانات تعبير الجينات (Gene Expression Omnibus) التابعة للمركز الوطني لمعلومات التقانة الحيوية (NCBI) | GSE4290 | مجموعة تقييم الترانسكريبتوم (النسخ الجيني) |
| الإحصائيات الملخصة لدراسة الارتباط الجينومي الكامل (GWAS) للورم الأرومي الدبقي | الأرشيف الأوروبي للجينوم والنمط الظاهري | EGAD00010001657 | بيانات نتائج خاضعة للوصول المقيد؛ 6,183 حالة و18,169 ضابطاً |
| تسلسل الحمض النووي الريبي (RNA) أحادي الخلية بتقنية Smart-seq2 لورم الأرومة الدبقية | مستودع التعبير الجيني التابع للمركز الوطني لمعلومات التقانة الحيوية (NCBI Gene Expression Omnibus) | GSE131928 | تحليل التعطيل الافتراضي للخلايا الخبيثة |
| تسلسل الحمض النووي الريبوزي الشامل لورم دبقي من الدرجة الرابعة | مستودع التعبير الجيني (Gene Expression Omnibus) التابع للمركز الوطني لمعلومات التقانة الحيوية (NCBI) | GSE196533 | مجموعة تقييم النسخ المتعددة (Transcriptomic evaluation cohort) |
| إحصائيات ملخصة لـ cis-eQTL في الدم الكامل من مشروع GTEx | مشروع التعبير الجيني في الأنسجة (Genotype-Tissue Expression project) | GTEx V10 | بيانات التعرض في مرحلة التضاعف |
| limma | Bioconductor | الإصدار 3.62.2 | تحليل التعبير التفاضلي للمصفوفات الدقيقة |
| استعارة | حزمة R | الإصدار 4.8-0 | التحليل التلوي ذو التأثيرات العشوائية |
| R | مؤسسة R للحوسبة الإحصائية | الإصدار 4.4.2 | بيئة الحوسبة الإحصائية |
| scTenifoldKnk | حزمة R | الإصدار 1.0.3 | تحليل التعطيل الافتراضي للجينات على مستوى الخلية الواحدة |
| مصفوفة دقيقة للكتلة الجوهرية للورم والكتلة المحيطة بالورم | مستودع التعبير الجيني NCBI Gene Expression Omnibus | GSE116520 | مجموعة تقييم النسخ المتعددة (Transcriptome) |
| TwoSampleMR | حزمة R | الإصدار 0.6.29 | العشوائية المندلية ذات العينتين |
| الإحصاءات الملخصة لمواقع السمات الكمية للتعبير الجيني المتجاورة (cis-eQTL) في الدم الكامل | اتحاد eQTLGen | eQTLGen | بيانات التعرض في مرحلة الاكتشاف |
المراجع
- Weller M, et al. EANO guidelines on the diagnosis and treatment of diffuse gliomas of adulthood. Nat Rev Clin Oncol. 2021;18:170-186.
- Stupp R, et al. Radiotherapy plus concomitant and adjuvant temozolomide for glioblastoma. N Engl J Med. 2005;352:987-996.
- McBain C, et al. Treatment options for progression or recurrence of glioblastoma: a network meta-analysis. Cochrane Database Syst Rev. 2021;5:CD013579.
- Dixon SJ, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149:1060-1072.
- Stockwell BR, et al. Ferroptosis: A regulated cell death nexus linking metabolism, redox biology, and disease. Cell. 2017;171:273-285.
- Minami JK, et al. CDKN2A deletion remodels lipid metabolism, priming glioblastoma for ferroptosis. Cancer Cell. 2023;41:1048-1060.e1049.
- Kram H, et al. Glioblastoma relapses show increased markers of vulnerability to ferroptosis. Front Oncol. 2022;12:841418.
- Miao Z, et al. A targetable PRR11-DHODH axis drives ferroptosis- and temozolomide-resistance in glioblastoma. Redox Biol. 2024;73:103220.
- Liu HJ, et al. Ferroptosis-related gene signature predicts glioma cell death and glioma patient progression. Front Cell Dev Biol. 2020;8:538.
- Dong J, et al. Ferroptosis-related gene contributes to immunity, stemness, and predicts prognosis in glioblastoma multiforme. Front Neurol. 2022;13:829926.
- Robinson JW, et al. Transcriptome-wide Mendelian randomization study prioritizing novel tissue-dependent genes for glioma susceptibility. Sci Rep. 2021;11:2329.
- Zhang H, Wang Z, Qiao X, Wu J, Cheng C. Investigating potential drug targets for the treatment of glioblastoma: a Mendelian randomization study. BMC Cancer. 2025;25:654.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369:1318-1330.
- Zhou N, et al. FerrDb V2: update of the manually curated database of ferroptosis regulators and ferroptosis-disease associations. Nucleic Acids Res. 2023;51:D571-D582.
- Võsa U, et al. Large-scale cis- and trans-eQTL analyses identify thousands of genetic loci and polygenic scores that regulate blood gene expression. Nat Genet. 2021;53:1300-1310.
- Melin BS, et al. Genome-wide association study of glioma subtypes identifies specific differences in genetic susceptibility to glioblastoma and non-glioblastoma tumors. Nat Genet. 2017;49:789-794.
- Zeng C, et al. Dissection of transcriptomic and epigenetic heterogeneity of grade 4 gliomas: implications for prognosis. Acta Neuropathol Commun. 2023;11:133.
- Sun L, et al. Neuronal and glioma-derived stem cell factor induces angiogenesis within the brain. Cancer Cell. 2006;9:287-300.
- Kruthika BS, et al. Transcriptome profiling reveals PDZ binding kinase as a novel biomarker in peritumoral brain zone of glioblastoma. J Neurooncol. 2019;141:315-325.
- Neftel C, et al. An integrative model of cellular states, plasticity, and genetics for glioblastoma. Cell. 2019;178:835-849.e821.
- Burgess S, Thompson SG. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40:755-764.
- Papadimitriou N, et al. Physical activity and risks of breast and colorectal cancer: a Mendelian randomisation analysis. Nat Commun. 2020;11:597.
- Song W, et al. Causal relationship between gut microbiota and lung squamous cell carcinoma: a bidirectional two-sample Mendelian randomization study. Postgrad Med J. 2025;101:526-534.
- Zhao J, et al. Bayesian weighted Mendelian randomization for causal inference based on summary statistics. Bioinformatics. 2020;36:1501-1508.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43:e47.
- Yun D, et al. A novel prognostic signature based on glioma essential ferroptosis-related genes predicts clinical outcomes and indicates treatment in glioma. Front Oncol. 2022;12:897702.
- Li R, et al. Identification of candidate genes associated with prognosis in glioblastoma. Front Mol Neurosci. 2022;15:913328.
- Bai H, Inoue J, Kawano T, Inazawa J. A transcriptional variant of the LC3A gene is involved in autophagy and frequently inactivated in human cancers. Oncogene. 2012;31:4397-4408.
- Hayashima K, Kimura I, Katoh H. Role of ferritinophagy in cystine deprivation-induced cell death in glioblastoma cells. Biochem Biophys Res Commun. 2021;539:56-63.
- Wu Y, et al. ALDH1-mediated autophagy sensitizes glioblastoma cells to ferroptosis. Cells. 2022;11:4015.
- Carriere A, et al. ERK1/2 phosphorylate Raptor to promote Ras-dependent activation of mTOR complex 1 (mTORC1). J Biol Chem. 2011;286:567-577.
- Dai E, Meng L, Kang R, Wang X, Tang D. ESCRT-III-dependent membrane repair blocks ferroptosis. Biochem Biophys Res Commun. 2020;522:415-421.
- Comincini S, et al. microRNA-17 regulates the expression of ATG7 and modulates the autophagy process, improving the sensitivity to temozolomide and low-dose ionizing radiation treatments in human glioblastoma cells. Cancer Biol Ther. 2013;14:574-586.
- Wang L, et al. Autophagy mediates glucose starvation-induced glioblastoma cell quiescence and chemoresistance through coordinating cell metabolism, cell cycle, and survival. Cell Death Dis. 2018;9:213.