دمجت هذه الدراسة بين علم الصيدلة الشبكي، والرسو الجزيئي، والديناميكا الجزيئية، وطريقة MM-PBSA لتحديد أولويات التفاعلات البروتينية المحتملة للأدوية الأولية التي تحبس المواقع غير القاعدية والمستجيبة للجلوتاثيون في سرطان الرئة غير صغير الخلايا (NSCLC). تم إعطاء الأولوية للمركب 5 لمتابعة تفاعله مع MMP9 و SRC؛ ومع ذلك، تظل هذه المركبات مرشحة حسابياً. وتعتبر هذه النتائج مولدة للفرضيات وتتطلب التحقق البيوكيميائي والخلوي.
مقالة بحثية
تحديد الأولويات الحاسوبي للتفاعلات البروتينية المحتملة للأدوية الأولية الموجهة لاحتجاز المواقع عديمة القاعدة والمستجيبة للجلوتاثيون في سرطان الرئة غير صغير الخلايا
في هذه المقالة
ملخص
الملخص
لا يزال سرطان الرئة غير صغير الخلايا (NSCLC) سببًا رئيسيًا للوفيات المرتبطة بالسرطان، وغالبًا ما تكون فعالية العلاج محدودة بسبب المقاومة المكتسبة والسمية الجهازية. وقد أظهرت الأدوية الأولية التي تحبس المواقع غير القاعدية والمستجيبة للجلوتاثيون نشاطًا انتقائيًا مضادًا للسرطان في دراسات تجريبية سابقة، ولكن لم يتم بعد تحديد ما إذا كانت نواتج استقلابها المتحررة تظهر أيضًا تفاعلات ذات دلالة مع البروتينات المرتبطة بالسرطان. هنا، تم استخدام سير عمل متكامل in silico يجمع بين علم الصيدلة الشبكي، والالتحام الجزيئي، والديناميكيات الجزيئية (MD)، وتحليل مساحة السطح بوارسون-بولتزمان للميكانيكا الجزيئية (MM-PBSA) لتحديد أولويات فرضيات التفاعل البروتيني القابلة للاختبار لدواءين أوليين مستجيبين للجلوتاثيون (المركب 1 والمركب 2)، ونواتجهما التي تحتوي على الأمينو-أكسي (المركب 4 والمركب 5)، وزوج ضابط مطابق غير حابس (المركب 3 والمركب 6). تم تحديد واحد وعشرين هدفًا متقاطعًا مرتبطًا بالمركبات والأمراض، وتم إعطاء الأولوية لكل من كيناز السيرين/ثريونين 1 (AKT1)، ومستقبل عامل نمو البشرة (EGFR)، وعامل نخر الورم (TNF)، وميتالوبروتياز المصفوفة 9 (MMP9)، وبروتو-أونكو جين SRC غير مستقبل تيروزين كيناز (SRC) بناءً على طوبولوجيا التفاعل بين البروتينات. حقق المركب 5 أفضل درجة مفردة لبرنامج AutoDock Vina مع MMP9 (-8.418 kcal·mol⁻1)، وأظهر وضعيات التحام مستمرة نسبيًا عبر مسارات الديناميكيات الجزيئية لـ MMP9 و SRC. ومع ذلك، لم تظهر الوضعية الأعلى تصنيفًا لـ MMP9 تنسيقًا مباشرًا لأيون الزنك التحفيزي Zn2⁺ أو ارتباطًا مباشرًا بكل من His401 أو Glu402 أو His405 أو His411، لذا لا يمكن تصنيفها كنمط ارتباط تثبيطي تقليدي لـ MMP9. وتحدد تحليلات MD و MM-PBSA فقط سلوك المسار والتصنيف الطاقي النسبي لهذه المعقدات؛ وهي لا تثبت الارتباط بالهدف داخل الخلايا، أو تثبيط الإنزيم، أو تنظيم المسار. وبناءً على ذلك، يتم التعامل مع نشاط حبس المواقع غير القاعدية المثبت والتفاعلات البروتينية المتوقعة حديثًا كفرضيات منفصلة ومتوازية محتملة بدلاً من كونها سلسلة ميكانيكية مثبتة. وبشكل عام، تحدد النتائج أولويات لأزواج محددة من المركبات والأهداف للاختبار المستقبلي، لكنها لا تثبت آلية متعددة الأهداف لمكافحة سرطان الرئة غير صغير الخلايا (NSCLC).
المقدمة
يعد سرطان الرئة غير صغير الخلايا (NSCLC) النوع النسيجي الأكثر شيوعًا لسرطان الرئة، ولا يزال سببًا رئيسيًا للوفيات المرتبطة بالسرطان في جميع أنحاء العالم1. وعلى الرغم من إحراز تقدم كبير في العلاج الموجه وعلم الأورام الدقيق، إلا أن فعالية العلاج على المدى الطويل لا تزال تتأثر غالبًا بالمقاومة المكتسبة، ومحدودية ديمومة الاستجابة، والسمية المرتبطة بالعلاج2. وقد أدت العوامل الموجهة لمستقبل عامل نمو البشرة (EGFR) إلى تحسين النتائج لدى المرضى الذين تم اختيارهم جزيئيًا، ومع ذلك، فإن المقاومة تتطور بشكل حتمي تقريبًا أثناء العلاج، مما يخلق حاجة ملحة لاستراتيجيات علاجية تعمل من خلال آليات بديلة أو تكميلية3,4. لا يزال العلاج الكيميائي التقليدي القائم على البلاتين مكونًا مهمًا من العلاج، ولكن فائدته السريرية مقيدة بالسمية التراكمية والمقاومة أثناء الاستخدام المطول5,6. وتبرز هذه القيود مجتمعة الحاجة إلى تحديد عوامل مضادة للأورام تكون متميزة من حيث الآلية ومفعلة بشكل انتقائي في بيئة الورم.
من بين الآفات الداخلية في الحمض النووي DNA، تتوفر المواقع عديمة القاعدة أو عديمة البيريميدين بكثرة وذات عواقب بيولوجية كبيرة، حيث يتم توليد الآلاف من هذه الآفات في كل خلية يومياً7. وعندما لا يتم إصلاح هذه الآفات بكفاءة، يمكن أن تتحول إلى كسور في السلسلة، مما قد يؤدي إلى تعزيز عدم الاستقرار الجينومي وموت الخلايا8,9. ويُعد إنزيم Apurinic/apyrimidinic endonuclease 1 إنزيماً مركزياً في مسار إصلاح استئصال القاعدة لأنه يقوم بشق المواقع عديمة القاعدة ويمكّن من عمليات الإصلاح اللاحقة10,11. وقد جعل هذا الاعتماد على الإصلاح من التلف المرتبط بالمواقع عديمة القاعدة هدفاً جذاباً لتطوير الأدوية المضادة للسرطان12. وبناءً على هذا الأساس، تم سابقاً تطوير أدوية أولية محاصِرة للمواقع عديمة القاعدة تستجيب للجلوتاثيون لاستغلال بيئة الجلوتاثيون المرتفعة في الخلايا الورمية. تحتوي نواتجها التي يحفزها الجلوتاثيون على وظيفة aminooxy قادرة على حصار المواقع عديمة القاعدة الألدهيدية، وقد أظهرت الأعمال التجريبية السابقة سمية خلوية انتقائية، وتوقف الدورة الخلوية، والموت الخلوي المبرمج في خلايا H129913. وتدعم هذه البيانات مكون حصار آفات DNA في تصميم المركب. ومع ذلك، فهي لا تظهر أن MMP9 أو SRC أو EGFR أو AKT1 أو TNF يتم تنظيمها في المراحل اللاحقة لحصار المواقع عديمة القاعدة. لذا، يجب اعتبار أي تفاعل بين البروتين والهدف يتم تحديده في التحليل الحاسوبي الحالي كفرضية منفصلة ما لم يتم إثبات كلتا العمليتين في النظام البيولوجي نفسه.
تم تصميم الدراسة الحالية بناءً على هذا التمييز. يتمثل المستوى الأول من الأساس البيولوجي في كيمياء التحرير المستجيبة للجلوتاثيون وحجز المواقع غير القاعدية التي تم إثباتها سابقاً14. أما المستوى الثاني، والذي يتم فحصه هنا، فهو سؤال استكشافي: ما إذا كانت الأدوية الأولية الأم أو نواتج تحررها متوافقة حاسوبياً مع بروتينات مختارة مرتبطة بالسرطان. تم استخدام علم الصيدلة الشبكي لتحديد أولويات البروتينات المرشحة، يليه إجراء عمليات الإرساء (docking)، والمحاكاة الديناميكية الجزيئية (MD)، وتحليلات MM-PBSA لفحص معقدات بروتين-ربيطة مختارة15,16. لم يكن الغرض من هذه الحسابات إثبات أن البروتينات المتوقعة تتوسط النمط الظاهري المعروف لتلف DNA، ولا إنشاء رابط سببي بين حجز المواقع غير القاعدية والإشارات المسرطنة. وبدلاً من ذلك، تم استخدام سير العمل هذا لتوليد مجموعة مرتبة من الفرضيات القابلة للاختبار تجريبياً، والتي يمكن تقييمها لاحقاً من خلال اختبارات الارتباط المباشر، ونشاط الإنزيم، والمسارات، وتلف DNA، واختبارات النمط الظاهري.
البروتوكول
لم تكن موافقة مجلس المراجعة المؤسسية مطلوبة لأن هذه الدراسة كانت حوسبية بالكامل ولم تتضمن أي مشاركين بشريين، أو حيوانات فقارية، أو عينات حيوية مشتقة من مرضى، أو بيانات شخصية يمكن تحديد الهوية من خلالها. وبناءً على ذلك، لم يكن الحصول على موافقة مستنيرة قابلاً للتطبيق. جميع قواعد البيانات، وحزم البرمجيات، وحقول القوة، والموارد الحوسبية المستخدمة في هذا البروتوكول مدرجة في جدول المواد.
المركبات المدروسة وسير العمل التحليلي
استُخدمت مركبات حبس المواقع غير القاعدية المستجيبة للجلوتاثيون والتي تم الإبلاغ عنها سابقاً كجزيئات للدراسة17. تم اختيار المركب 1 والمركب 2 كأدوية أولية أصلية لأن الانشطار المحفز بالجلوتاثيون يولد النواتج المحتوية على الأمينو-أوكسي، وهما المركب 4 والمركب 5 على التوالي. كما تم اختيار المركب 4 والمركب 5 للتحليل البنيوي لأنهما يمثلان الأنواع المتحررة التي تحتفظ بمجموعة الأمينو-أوكسي التفاعلية مع المواقع غير القاعدية. وقد أُدرج المركب 3 كضابط بنيوي مطابق مستجيب للجلوتاثيون؛ حيث يفتقر ناتج انشطاره، المركب 6، إلى وظيفة الأمينو-أوكسي المطلوبة للحبس التساهمي لألدهيدات المواقع غير القاعدية. وبناءً على ذلك، أُدرجت المركبات 1–3 في التنبؤ العكسي بالأهداف لمقارنة الهياكل الأصلية، وقُيم المركبان 4 و5 مقابل البروتينات ذات الأولوية، واستُخدم المركب 6 كربيطة ضابطة سلبية في مقارنة SRC MD. وقد أُدرج مسار SRC–المركب 6 لتوفير مقارن بنيوي مطابق لنظام المركب 5 المحتوي على الأمينو-أوكسي، وليس كدليل على أن مجموعة الأمينو-أوكسي نفسها هي التي تحدد ارتباط SRC. تظهر البنى الكيميائية وعلاقات التنشيط للمركبات 1–6 في الشكل 1. يحافظ هذا التصميم عمداً على فصل كيمياء حبس آفات DNA الراسخة عن التحليل الحالي المولد للفرضيات حول تفاعلات البروتين الممكنة.
التنبؤ بالأهداف المرتبطة بالمركب
تم حفظ الهياكل ثنائية الأبعاد للمركب 1 (Compound 1)، والمركب 2 (Compound 2)، والمركب 3 (Compound 3) بتنسيق MDL MOL، ثم حُوِّلت إلى سلاسل نظام إدخال السطور الجزيئية المبسطة (SMILES) المعيارية باستخدام برنامج Open Babel الإصدار 3.1.1 مع اختيار تنسيق مخرجات SMILES المعياري18. أُعيد استيراد كل سلسلة مُصدّرة، وتم التحقق بصرياً من الهيكل المُعاد توليده ومقارنته بالهيكل ثنائي الأبعاد المقابل قبل إرسالها إلى SwissTargetPrediction، مع قصر الأنواع على Homo sapiens19. تم الاحتفاظ بالأهداف المتوقعة التي كانت قيم احتمالاتها غير صفرية. دُمجت قوائم الأهداف التي تم الحصول عليها للمركبات الثلاثة، وحُذفت المدخلات المكررة، ووُحِّدت الأهداف المتبقية وفقاً لرموز الجينات البشرية الرسمية قبل إجراء المزيد من التحليلات. استُوردت أزواج (المركب-الهدف) الموحدة إلى برنامج تحليل وتصوير الشبكات كجدول شبكة، حيث مُثِّلَت المركبات والأهداف المتوقعة كعُقد (nodes) ومُثِّلَت العلاقات بين المركب والهدف كحواف (edges)، وذلك لتصوير علاقات الأهداف المتوقعة20.
استرجاع الأهداف المرتبطة بالمرض وتحديد الأهداف المتقاطعة
تم استرجاع الأهداف المرتبطة بالمرض من قاعدة بيانات GeneCards باستخدام مصطلح البحث “lung cancer H1299”21. وتم تطبيق حد أدنى لدرجة الصلة أكبر من 0.27 للاحتفاظ بالجينات ذات الصلة القوية بهذا الاستعلام. كما تم توحيد رموز الجينات، وإزالة الإدخالات المكررة يدويًا. وتم تحديد التداخل بين الأهداف المتوقعة للمركب والأهداف المرتبطة بالمرض باستخدام أداة تحليل التقاطع/مخطط فين عبر الإنترنت22. واقتصر الاحتفاظ على الأهداف المتقاطعة فقط لإجراء تحليلات تفاعل البروتين-بروتين (PPI)، والتحليل الإثرائي، وتحديد أولويات الأهداف لاحقًا.
تحليل التفاعل بين البروتينات وفحص الأهداف الأساسية
تم إدخال الأهداف المتقاطعة في أداة البحث عن استرجاع الجينات/البروتينات المتفاعلة (STRING) الإصدار 11.5، مع قصر النوع على Homo sapiens وتحديد الحد الأدنى المطلوب لدرجة التفاعل عند 0.40023. ثم استوردت بيانات تفاعلات البروتين-بروتين (PPI) الناتجة إلى برنامج Cytoscape الإصدار 3.10.0 للتصور والتحليل الطوبولوجي. وباستخدام ملحق تحليل طوبولوجيا الشبكة ، تم حساب الدرجة (degree)، ومركزية البينية (betweenness centrality)، ومركزية القرب (closeness centrality) لكل عقدة في شبكة PPI الأصلية المكونة من 21 عقدة؛ ثم استُخدمت القيم الناتجة في عملية التصفية المتسلسلة القائمة على الوسيط والموضحة أدناه24. حُسبت مقاييس المركزية على شبكة PPI الأصلية المكونة من 21 عقدة ثم استُخدمت للتصفية المتسلسلة. كان وسيط الدرجة في الشبكة الأصلية هو 12، وتم الاحتفاظ بالعقد التي كانت درجتها ≥ 12، مما نتج عنه 13 مرشحاً. ومن بين هؤلاء المرشحين الـ 13، كان وسيط مركزية البينية 0.031293، وكان وسيط مركزية القرب 0.769231. وقد احتفظ المرشح الثاني بالعقد التي كانت مركزية البينية فيها ≥ 0.031293 ومركزية القرب > 0.769231، مما أسفر عن خمسة مرشحين كمراكز محورية (hub candidates) وهم: AKT1، وEGFR، وTNF، وMMP9، وSRC. وقد تم نقل قيم المركزية المسجلة من الشبكة الأصلية المكونة من 21 عقدة بدلاً من إعادة حسابها بعد عملية تقسيم المجموعات. استُخدم المرشحون الخمسة النهائيون للمراكز المحورية في التحليل الهيكلي اللاحق. وتتوافق المقاييس الطوبولوجية الأصلية مع شبكة PPI غير موجهة تحتوي على 21 عقدة و116 حافة.
تحليل الإثراء باستخدام علم الوجود الجيني وموسوعة كيوتو للجينات والجينومات
خضعت الأهداف المتقاطعة لتحليل إثراء الأنطولوجيا الجينية (GO) وموسوعة كيوتو للجينات والجينومات (KEGG) باستخدام قاعدة بيانات التوصيف والتصور والاكتشاف المتكامل (DAVID)، مع قصر الأنواع على Homo sapiens25. تم تقييم إثراء GO للعملية البيولوجية (BP)، والمكون الخلوي (CC)، والوظيفة الجزيئية (MF)، بالإضافة إلى مسارات إشارات KEGG. وفي هذا التحليل الاستكشافي، تم استخدام قيمة p الاسمية < 0.10 كحد أدنى للإدراج للاحتفاظ بمدخلات الإثراء؛ وتم تسجيل قيم p المعدلة وفقاً لـ Benjamini، وقيم Bonferroni، ومعدلات الاكتشاف الخاطئ، وقيم اختبار Fisher الدقيق في الجداول التكميلية، ولكن لم تُستخدم لتحديد المجموعة التي تم الاحتفاظ بها. رُتبت المدخلات التي تم الاحتفاظ بها حسب قيمة p الاسمية. ومن أجل التصور والتفسير اللاحقين، تم الاحتفاظ بأعلى 20 مساراً من مسارات KEGG وأعلى 10 مصطلحات من كل فئة من فئات GO. أُنشئت المخططات الشريطية ومخططات الفقاعات باستخدام أداة تصور للمعلوماتية الحيوية عبر الإنترنت.
تحضير المستقبلات والروابط للرسو الجزيئي
تم استرجاع البنى البلورية للبروتينات ذات الأولوية من بنك بيانات البروتينات (PDB) التابع لـ RCSB: البروتين AKT1، معرف PDB 3O96؛ والبروتين EGFR، معرف PDB 5UWD؛ والبروتين TNF، معرف PDB 2AZ5؛ والبروتين MMP9، معرف PDB 1GKC؛ والبروتين SRC، معرف PDB 2H8H. جُهزت بنى البروتينات المستخدمة في عملية الإرساء (docking) باستخدام برنامج للتصور الجزيئي عن طريق إزالة الليجاندات وجزيئات الماء التي تمت بلورتها معاً، متبوعة بالمعالجة في برنامج مخصص لتحضير الإرساء. بالنسبة للبروتين MMP9، تم الاحتفاظ بنسخة غير معدلة من PDB 1GKC بشكل منفصل كمرجع بلوري لبيئة Zn2⁺ الحفزية ونمط ارتباط N2-[(2R)-2-{[formyl(hydroxy)amino]methyl}-4-methylpentanoyl]-N,3-dimethyl-L-valinamide (NFH). في السلسلة A من 1GKC، يتم تنسيق Zn2⁺ الحفزي بواسطة His401 وHis405 وHis411 عند 2.21 و2.23 و2.22 Å على التوالي، بينما تنسق ذرتا أكسجين NFH أيون Zn2⁺ عند 2.07 و2.38 Å؛ ويمثل Glu402 بقايا الحمض/القاعدة الحفزية. استُخدمت هذه الاتصالات البلورية كمرجع بنيوي إيجابي لتقييم خريطة تفاعل إرساء المركب Compound 5. وبالنسبة لـ SRC، استُخدم PDB 2H8H في حسابات الديناميكا الجزيئية (MD) لـ SRC. استُخدمت هذه المقارنات البنيوية لأغراض التفسير فقط ولم تُعتبر دليلاً على تثبيط الإنزيم أو الارتباط بالهدف داخل الخلايا.
تم الحصول على الهياكل ثلاثية الأبعاد للمركب Compound 4 والمركب Compound 5 من قاعدة بيانات PubChem، وتم تحسينها عن طريق تقليل الطاقة باستخدام برنامج النمذجة الجزيئية26. تمت برتنة الربائط (Ligands) في ظل الظروف الفسيولوجية وتقليل طاقتها باستخدام مجال القوة الجزيئي Merck 94 (MMFF94) حتى أصبح تدرج الطاقة أقل من 0.01 kcal·mol⁻1·Å⁻1. كما تمت إضافة ذرات الهيدروجين، وتعيين شحنات Gasteiger، وتحديد الروابط القابلة للدوران في برنامج تحضير الإرساء (docking-preparation). أما المركب Compound 6، وهو ناتج انشطار الجلوتاثيون للمركب الضابط غير الحاصد Compound 3، فقد تم تحضيره باستخدام سير العمل نفسه وإرساؤه على SRC فقط لتوليد الوضعية الأولية لمسار محاكاة الديناميكا الجزيئية (MD trajectory) الخاص بالضابط المطابق. وبناءً على ذلك، لم يتم تقديم المركب Compound 6 كربيطة علاجية متوقعة إضافية، ولم يُستخدم لدعم آلية تستهدف أهدافاً متعددة.
إجراء الالتحام الجزيئي
أُجري الإرساء الجزيئي باستخدام برنامج للإرساء الجزيئي وفق بروتوكول إرساء شبه مرن، حيث تم تثبيت المستقبلات مع السماح للربيطات بالبقاء مرنة27,28. وبالنسبة لكل مستقبل، تم تمركز صندوق الإرساء على موضع الربيطة المبلورة معاً بحيث تتطابق منطقة البحث مع جيب الارتباط المحدد تجريبياً. وقد حُددت أبعاد صندوق الإرساء لتكون 24 Å × 24 Å × 24 Å لكل من AKT1 و EGFR و SRC، و 26 Å × 26 Å × 26 Å لـ MMP9، و 28 Å × 28 Å × 28 Å لـ TNF. كما تم ضبط درجة الشمولية (Exhaustiveness) عند 32، وتحديد عدد الوضعيات المخرجة بـ 20، ونطاق الطاقة عند 4 kcal·mol⁻1. وتم الاحتفاظ بالتشكيل الأعلى تصنيفاً من كل عملية إرساء لتحليل التفاعلات.
لتقييم الموثوقية الداخلية لإعدادات الإرساء الجزيئي، تمت إعادة إرساء كل ربيطة متبلورة معاً في جيب المستقبل المقابل لها باستخدام نفس المعاملات، مع اعتماد انحراف جذر متوسط المربع (RMSD) للذرات الثقيلة بأقل من 2.0 Å كمعيار للقبول. وفُحصت الوضعيات النهائية باستخدام برنامج للتصور الجزيئي. وبالنسبة لمعقد MMP9–Compound 5، فُحصت خريطة التفاعلات المحفوظة خصيصاً للتأكد من التنسيق المباشر الملحوظ للربيطة مع أيون Zn2⁺ التحفيزي، ومن وجود تماسات مع His401 وGlu402 وHis405 وHis411، وقورنت وضعية الربيطة مع وضعية NFH البلورية في PDB 1GKC. ولم يتم تسجيل مسافة تنسيق معدني كمية إلا عندما كان التنسيق المباشر بين الربيطة وZn2⁺ واضحاً في الوضعية المحفوظة؛ وخلاف ذلك، تم تصنيفها على أنها غير قابلة للتطبيق بدلاً من استنتاجها. وبناءً على ذلك، فإن أي وضعية إرساء لـ MMP9 تفتقر إلى هذه السمات المعهودة للموقع التحفيزي صُنفت على أنها غير نمطية ولم تُفسر كدليل على تثبيط إنزيم MMP9. وبشكل عام، استُخدمت درجات AutoDock Vina ووضعيات الإرساء لتحديد الأولويات النسبية ووضع الفرضيات، وليس كإثبات على ألفة الارتباط أو التفاعل مع الهدف داخل الخلايا.
بروتوكول الديناميكا الجزيئية
تم إنشاء معقدات البروتين-الربيطة المختارة لتحليل الديناميكا الجزيئية (MD) بناءً على وضعيات الارتباط المستمدة من عملية الإرساء الجزيئي. أُجريت حسابات الديناميكا الجزيئية باستخدام برنامج GROMACS29. تم تحديد بارامترات البروتينات باستخدام حقل القوة CHARMM36، بينما تم تعيين أنواع ذرات الربيطة وبارامتراتها باستخدام الجيل الثاني من حقل القوة العام لـ Amber (GAFF2)30,31. تم توليد الشحنات الجزئية لتصحيح روابط Austin Model 1-bond charge correction (AM1-BCC) من خلال أدوات تحديد بارامترات الجزيئات الصغيرة وتوليد طوبولوجيا الربيطة؛ ومن ثم قام برنامج توليد طوبولوجيا الربيطة بإنشاء ملفات الطوبولوجيا المتوافقة مع برنامج GROMACS32,33,34. وُضع كل معقد في صندوق مائي من نوع TIP3P تحت شروط حدودية دورية مع مسافة لا تقل عن 1.0 nm بين المذاب وجدار الصندوق. أُضيفت أيونات الصوديوم والكلور لمعادلة الشحنة الكلية في كل نظام، كما أُضيف NaCl إضافي لتحقيق قوة أيونية نهائية قدرها 0.15 M.
أُجري تقليل الطاقة باستخدام خوارزمية الانحدار الشديد (steepest-descent) حتى انخفضت القوة القصوى إلى أقل من 1000 kJ·mol⁻1·nm⁻1. بعد ذلك، تم موازنة الأنظمة المُقللة للطاقة تحت ظروف ثابتة لعدد الجسيمات والضغط ودرجة الحرارة (NPT) عند 310 K و1 bar مع تطبيق قيود موضعية على الهيكل البروتيني. تم التحكم في درجة الحرارة باستخدام منظم الحرارة V-rescale، وفي الضغط باستخدام منظم الضغط Parrinello-Rahman. حُسبت التفاعلات الكهروستاتيكية طويلة المدى باستخدام طريقة particle mesh Ewald. تم تعيين حد القطع للكهروستاتيكيات قصيرة المدى وحد قطع فان دير فالس (van der Waals) عند 1.0 nm، كما تم تقييد جميع الروابط التي تشتمل على ذرات الهيدروجين باستخدام خوارزمية linear constraint solver (LINCS). أُنتجت مسارات الإنتاج لمدة 150 ns وبخطوة زمنية للتكامل قدرها 2-fs، مع حفظ الإحداثيات كل 10 ps للتحليل اللاحق.
تحليل المسار
أُجريت تحليلات المسار على الأجزاء المتوازنة من مسارات الإنتاج. وحُسبت قيمة RMSD للعمود الفقري للبروتين وقيمة RMSD للّجيند بعد إجراء ملاءمة المربعات الصغرى مع التشكيل المرجعي الأولي. كما حُسبت قيم تقلب جذر متوسط المربع (RMSF) على أساس كل ثمالة باستخدام ذرات Cα. وأُجري تحليل الروابط الهيدروجينية بين كل لجيند ومستقبله باستخدام حد أقصى للمسافة بين المانح والمستقبل يبلغ 3.5 Å وحد أقصى لزاوية المانح-الهيدروجين-المستقبل يبلغ 30°. وعُرِّف إشغال الرابطة الهيدروجينية بأنه نسبة الإطارات التي تم تحليلها والتي كانت الرابطة الهيدروجينية المحددة موجودة فيها. واستُخدمت هذه المقاييس لتوصيف الاستقرار البنيوي، والمرونة على مستوى الثمالات، واستمرارية الاتصالات بين الجزيئات عبر مسارات MD الثلاثة.
حساب الطاقة الحرة للارتباط باستخدام ميكانيكا الجزيئات ومساحة السطح لبواسون-بولتزمان (MM-PBSA)
تم حساب طاقة الارتباط الحرة باستخدام طريقة MM-PBSA التي تم تنفيذها بواسطة برنامج تحليل MM-PBSA على المقاطع المتزنة من مسارات MD35. وبالنسبة لكل معقد بروتين-رابط، تم استخدام الـ 50 ns الأخيرة من مسار الإنتاج البالغ 150 ns لتحليل الطاقة الحرة. تم أخذ عينات من إجمالي 500 إطار متباعدة بالتساوي بفواصل زمنية قدرها 100 ps من 100.0 ns حتى 149.9 ns؛ مع استبعاد نقطة النهاية عند 150.0 ns من المجموعة التي تم أخذ عيناتها. وقد حُسب إجمالي طاقة الارتباط الحرة كمجموع لطاقة van der Waals، والطاقة الكهروستاتيكية، وطاقة التذوب القطبية، وبنود طاقة التذوب غير القطبية:
ΔG_bind = ΔE_vdW + ΔE_ele + ΔG_polar + ΔG_nonpolar (1)
لم يتم تطبيق أي تصحيح للإنتروبيا. وقد تم حساب متوسط طاقات الارتباط الحرة والانحرافات المعيارية عبر جميع الإطارات التي تم أخذ عينات منها.
ضوابط التكرار والتحقق الحسابي
تم توحيد جميع أسماء الجينات المستخدمة في خطوات التنبؤ بالأهداف، واسترجاع الأهداف المرضية، وتحليل التقاطع وفقاً لرموز الجينات البشرية الرسمية قبل إجراء التحليلات اللاحقة. تم الحفاظ على بارامترات إرساء متماثلة لجميع أزواج المستقبل-الرابط. تم التحقق تقنياً من إعدادات الإرساء عن طريق إعادة إرساء الرابط المتبلور المشترك المقابل في جيب كل مستقبل باستخدام إعدادات البحث ذاتها وعتبة قبول RMSD للذرات الثقيلة المحددة مسبقاً بـ <2.0 Å. تم الاحتفاظ بمعقد MMP9–NFH البلوري كمرجع هيكلي إيجابي لبيئة Zn2⁺ التحفيزية، بينما استُخدم SRC–Compound 6 كمقارن مطابق غير اصطيادي لتحليل مسار SRC. كما فُحصت مسارات MD للتأكد من استقرار درجة الحرارة والضغط وعدم وجود انزياح غير طبيعي في حجم الصندوق قبل إدراجها في التحليلات اللاحقة. تم أرشفة جميع ملفات الإدخال، وهياكل المستقبلات، وملفات توبولوجيا الروابط، وملفات تكوين الإرساء، وملفات بارامترات MD، وسجلات اختيار إطارات MM-PBSA لدعم إمكانية إعادة التكرار الحسابي.
النتائج
تنبؤ بالأهداف المرتبطة بالمركب وتحديد الأهداف المتداخلة
أدت التنبؤات العكسية بالأهداف للمركبات 1–3 إلى تحديد 212 هدفًا بشريًا محتملًا. في موازاة ذلك، سمح استرجاع الأهداف المرتبطة بالمرض من قاعدة بيانات GeneCards باستخدام العبارة المفتاحية "سرطان الرئة H1299" وحد أدنى لمدى الصلة يفوق 0.27 بتحديد 188 هدفًا مرتبطًا بسرطان الرئة غير صغير الخلايا (NSCLC). وقد كشف تحليل التقاطع بين الأهداف المتنبأ بها للمركبات والأهداف المرتبطة بالمرض عن وجود 21 هدفًا مشتركًا، تم الاحتفاظ بها لجميع التحليلات اللاحقة. ويُظهر التقاطع بين مجموعتي الأهداف في الشكل 2. تشير هذه النتائج إلى أن المركبات المدروسة تركزت على مجموعة فرعية محدودة من الأهداف ذات الصلة بالمرض، بدلاً من الانتشار العشوائي عبر فضاء أهداف غير محدد وغير محدد الطابع.
تحليل التفاعل بين البروتينات وفحص الأهداف الأساسية
تم استيراد الأهداف المتقاطعة الـ 21 إلى قاعدة بيانات STRING لبناء شبكة تفاعل البروتين-البروتين (PPI). واحتوت الشبكة الناتجة على 21 عقدة و116 حافة. وتبلغ قيم درجات العقد في الجدول التكميلي 1 مجموعًا 232، وهو ما يتماشى مع وجود 116 حافة غير موجهة. وتم حساب قيم المركزية لهذه الشبكة الأصلية. وكان الوسيط للدرجة 12؛ وعند تطبيق شرط درجة ≥ 12 تم الاحتفاظ بـ 13 مرشحًا. ومن بين هؤلاء المرشحين الـ 13، كان الوسيط للمركزية بينية (betweenness centrality) 0.031293، وكان الوسيط للمركزية القربية (closeness centrality) 0.769231. وأدى تطبيق شرط مركزية بينية ≥ 0.031293 مع مركزية قربية > 0.769231 إلى تحديد خمسة مرشحين رئيسيين (Hub): AKT1، EGFR، TNF، MMP9، وSRC. والقيم المعروضة للمجموعات المحفوظة تمثل مقاييس المركزية الخاصة بالشبكة الأصلية المكونة من 21 عقدة، والتي تم نقلها خلال عملية التصفية؛ ولم يتم إعادة حسابها للشبكات الفرعية المكونة من 13 عقدة أو 5 عقد. واستُخدمت مركزية الشبكة فقط لترتيب المرشحين تمهيدًا للتقييم القائم على البنية، ولا ينبغي تفسيرها كدليل على أن هذه البروتينات هي أهداف بيولوجية للمركبات. وتشير الجدول التكميلي 1 والجدول التكميلي 2 والجدول التكميلي 3 إلى مقاييس الشبكة الأولية المكونة من 21 عقدة، والمرشحين الـ 13 المحتفظ بهم بعد الخطوة الأولى من التصفية، والمرشحين النهائيين الخمسة، على التوالي. ويُظهر الشكل 3A، الشكل 3B، الشكل 3C، و الشكل 3D عملية تصفية الشبكة التسلسلية والمرشحين الرئيسيين النهائيين الخمسة.
تحليل إثراء أونتولوجيا الجينات ومُوسوعة كيوتو للجينات والجينوم
أظهر تحليل التخصيب الوظيفي للـ 21 هدفًا المتقاطعة تحديد 121 مسارًا من مسارات KEGG التي استوفت معايير الدمج المحددة عند قيمة p < 0.10. ويُعرض في الشكل 4A أعلى 20 مسارًا من حيث الترتيب. ومن بين هذه المسارات، كانت مقاومة الهرمونات، ومسارات السرطان، والبروتيوغليكانات في السرطان، ومقاومة مثبطات التيروسين كيناز لمستقبلات EGFR، ومسار إشارة ErbB بارزة بشكل خاص. وترتبط هذه المسارات ارتباطًا وثيقًا بتضاعف الورم، وبقائه، وغزوه، ومقاومته للعلاج في سرطان الرئة غير صغير الخلايا (NSCLC). وتُقدَّم الإحصائيات الكاملة للتخصيب لجميع مسارات KEGG الـ 121 التي استوفت قيمة p < 0.10 في الجدول التكميلي 4.
حدد تحليل إثراء GO أيضًا 177 مصطلحًا في العمليات البيولوجية (BP)، و29 مصطلحًا في المكونات الخلوية (CC)، و61 مصطلحًا في الوظائف الجزيئية (MF) تفي بمعيار الإدراج الاسمي نفسه وهو p < 0.10. ويُعرض في الشكل 4B، الشكل 4C، والشكل 4D أعلى 10 مصطلحات مرتبة في كل فئة. وشملت العمليات البيولوجية السائدة التنظيم الإيجابي لانقسام الخلايا العضلية الملساء المرتبطة بالأوعية الدموية، والانتقال من الطور G2 إلى الطور M في دورة الخلية الانقسامية، وإشارات مستقبل عامل النمو الشبيه بالأنسولين، وفسفرة البروتين، والتنظيم السلبي لعملية الموت المبرمج (apoptosis)، وانتقال الإشارة. أما المصطلحات الرئيسية للمكونات الخلوية فكانت: النواة، وعوامات الغشاء، والالتحام البؤري، والغشاء البلازمي، ومنطقة التيلومير في الكروموسوم. على النقيض من ذلك، شملت أعلى مصطلحات الوظيفة الجزيئية المبينة في الشكل 4D نشاط كيناز البروتين، ونشاط كيناز سيرين البروتين، وارتباط ATP، ونشاط كيناز سيرين/ثريونين البروتين، ونشاط كيناز التيروسين البروتين، ونشاط كيناز تكرار الهبتا ببتيت في الذيل CTD لبوليميراز RNA II، ونشاط الكيناز، ونشاط كيناز الهيستون H2AXY142، ونشاط كيناز الهيستون H3Y41، وارتباط البروتينات المتماثلة. وتُقدَّم الإحصائيات الكاملة للإثراء الخاصة بالعمليات البيولوجية (BP)، والمكونات الخلوية (CC)، والوظائف الجزيئية (MF) في الجدول التكميلي 5، الجدول التكميلي 6، والجدول التكميلي 7. وتشير هذه النتائج الإثرائية مجتمعةً إلى أن مجموعة الأهداف المتقاطعة تتركز في عمليات الإشارات، وتنظيم البقاء، والاستجابة السرطانية ذات الصلة بتقدم سرطان الرئة غير صغير الخلايا (NSCLC).
الترتيب الأولوي للمعقدات الأيضية-الهدفية بالاعتماد على الارتباط الجزيئي
تم إجراء الارتباط الجزيئي بين المركب 4 والمركب 5 والبروتينات الخمسة ذات الأولوية وفقًا لطوبولوجيا الشبكة. القيم المذكورة في الجدول 1 هي درجات الارتباط باستخدام برنامج AutoDock Vina، وليست طاقة الارتباط الحرة المقاسة تجريبيًا. أنتج المركب 5 أفضل درجة ارتباط منفردة مع MMP9 (-8.418 كيلو كالوري·مول⁻1)، يليه المركب 4 مع MMP9 (-7.840 كيلو كالوري·مول⁻1). كما سجّل المركب 5 درجات أفضل من المركب 4 مع AKT1 وEGFR، في حين سجّل المركب 4 درجات أفضل قليلاً مع SRC (-6.549 مقابل -6.204 كيلو كالوري·مول⁻1) ومع TNF (-5.436 مقابل -5.299 كيلو كالوري·مول⁻1). وبالتالي، لم يُظهر المركب 5 تفوقًا موحدًا في الدرجات عبر البروتينات الخمسة. استُخدمت نتائج الارتباط فقط لتحديد الأولويات في اختيار المركبات التمثيلية لإجراء تحليل هيكلي إضافي.
تُظهر الشكل 5 تراكيب الارتباط التمثيلية. في خريطة التفاعل المرتبة الأولى بين MMP9 والمُركب 5، وُجدت التماسات المعروضة بالقرب من Ala417 وPro421، وبمسافات تبلغ حوالي 3.0 Å و2.4 Å على التوالي. لم يتم توثيق أي تناسق مباشر بين المركب 5 وZN2⁺ في خريطة التفاعل للوضعية العليا المحفوظة، ولم تُظهر أي تماسات مباشرة مع His401 أو Glu402 أو His405 أو His411. وهذا يتناقض مع المرجع البلوري 1GKC، الذي يُنسق فيه His401 وHis405 وHis411 أيون ZN2⁺ المحفز عند مسافات 2.21 و2.23 و2.22 Å، ويُنسق مثبط الهيدروكسيم العكسي NFH نفس أيون ZN2⁺ من خلال ذرتي أكسجين عند 2.07 و2.38 Å. وبما أن التناسق المباشر بين المركب 5 وZN2⁺ لم يُوثق في خريطة التفاعل المحفوظة، لم تُخصص أي مسافة تناسق بين المركب 5 وZN2⁺؛ ويُفسر هذا على أنه غياب دليل على التناسق المباشر في الخريطة المحفوظة، وليس كقيمة مُقاسة لفصل المعدن. ويُظهر الشكل التكميلي 1 مقارنة ثلاثية الأبعاد مع المرجع البلوري MMP9–NFH. وبالتالي، تختلف الهندسة عن نمط الارتباط المثالي المعتمد على الزنك، ولا تدعم نتيجة الارتباط الحالية تصنيف المركب 5 كمثبط لـ MMP9. وقد تم الاحتفاظ بـ MMP9 للتحليل الديناميكي الجزيئي فقط لتحديد ما إذا كانت هذه الهندسة غير المعيارية الخاصة بالارتباط تستمر خلال المسار الزمني. بالنسبة للمركبات الأخرى، أظهر المركب 5 تماسات متوقعة مع AKT1 وSRC، في حين شكّل المركب 4 تفاعلات ارتباط محددة مع MMP9 وSRC. وتماشيًا مع الشكل 5F، تصف هذه الملاحظات تفاعلات متوقعة ودرجات ارتباط نسبية، وليس ترابطات مُثبتة تجريبيًا.
تم اختيار ثلاث معقدات لتحليل الديناميكا الجزيئية لأغراض مقارنة، وليس تأكيدية. تم اختيار معقد MMP9–المُركب 5 لأنه حقق أفضل درجة ارتباط وحيدة، ولكن بوضع غير تقليدي لـ MMP9 تطلّب متابعة هيكلية حذرة. تم اختيار معقد SRC–المُركب 5 كمعقد مرشح ثانٍ، وتم إدراج معقد SRC–المُركب 6 كمسار ضابط غير مُحبس. تُعرض التكوينات الأولية المقابلة في الشكل 6A، الشكل 6B، و الشكل 6C. يتيح هذا التصميم مقارنة استمرارية هندسات الارتباط المختارة دون اعتبار استقرار الديناميكا الجزيئية دليلاً على الارتباط بالهدف أو التنظيم الوظيفي.
تحليل الديناميكا الجزيئية
لمقارنة استقرار هندسات الارتباط المختارة تحت ظروف مائية ديناميكية، تم توليد مسارات ديناميكية جزيئية (MD) لمدة 150 نانوثانية لكل من معقدي MMP9–المُركب 5 وSRC (PDB 2H8H)–المُركب 5، مع تضمين مسار تحكم سلبي مطابق هو SRC (PDB 2H8H)–المُركب 6. تُعرض التراكيب الأولية في الشكل 6A, الشكل 6B, و الشكل 6C. عبر هذه المسارات، أظهر المركب 5 انحرافاً جذريًا متوسطًا أقل للليجاند (RMSD)الشكل 6D) في نظامَي MMP9 وSRC مقارنةً بالمركب 6 في نظام SRC. وقد وصلت مسار الترابط بين MMP9 والمركب 5 إلى حالة نسبيًا منخفضة التقلبات، واستقر مسار الترابط بين SRC والمركب 5 بعد فترة تكيف أولية، في حين أظهر مسار الترابط بين SRC والمركب 6 تقلبات أكبر. تشير هذه الفروق إلى استمرارية أكبر لمواقع ارتباط المركب 5 المحددة خلال الديناميكا الجزيئية. ولا تُثبت هذه النتائج أن المركب 5 يرتبط بـ MMP9 أو SRC في الخلايا، كما أن مسار MMP9 لا يُعوّض غياب أيون الزنك التحفيزي المميّز2⁺ التفاعل في الوضعية الابتدائية.
أظهر انحراف الجذر التربيعي المتوسط (RMSD) للهيكل العظمي للبروتين نمطًا مقارنًا مشابهًا. فقد دخل مسار ارتباط MMP9–المُركب 5 في حالة استقرار نسبية للهيكل العظمي بعد نحو 30 نانوثانية، في حين أظهر مسار ارتباط SRC–المُركب 5 استقرارًا متأخرًا، بينما سجّل مسار ارتباط SRC–المُركب 6 تقلبات أكبر. تصف هذه الملاحظات سلوك المسارات فقط. ولا يمكن لاستقرار الهيكل العظمي للبروتين أو مسار الليجاند أن يثبت احتلال الهدف داخل الخلية، أو تثبيط الإنزيم، أو تنظيم الإشارات. تُقدَّم ملفات تعريف انحراف الجذر التربيعي المتوسط للهيكل العظمي للبروتين للأنظمة الثلاثة في الشكل التكميلي 2.
تحليل المسار
تم استخدام تحليلات اشغال الروابط الهيدروجينية وتذبذب الحمض الاميني لوصف استمرارية التماسك ضمن مسارات الديناميكا الجزيئية (الشكل 7A). أظهر المركب 5 رابطة هيدروجينية ذات اشغال عالي مع Arg95 في مسار MMP9 (>85%) وتفاعل متكرر مع Leu325 في مسار SRC (>70%)، في حين كانت التماسات تمثيلية في التحكم SRC–المركب 6 ذات اشغال أقل. هذه الحموض الأمينية لا تُعرض كدليل على تعديل الهدف الوظيفي؛ فقيم الاشغال تشير فقط إلى التكرار الذي حدثت فيه التماسات المحددة خلال المسارات المحللة.
أظهر تحليل RMSF لبقايا جيب الارتباط اختلافات محددة بالنظام في المرونة المحلية (الشكل 7B). أظهرت مسار التفاعل بين SRC–المُركب 6 تقلبات محلية أكبر بعدة مرات مقارنةً بمسار التفاعل بين SRC–المُركب 5، في حين أظهر مسار التفاعل بين MMP9–المُركب 5 ملفًا تقلبيًا أكثر تقييدًا ضمن مجموعة بقاياه الخاصة بجيب الارتباط. وبما أن MMP9 وSRC بروتينان مختلفان، لم يتم تفسير قيم RMSF الخاصة بهما على مستوى البقايا كمقارنة مباشرة بقاياً ببقايا. إلى جانب اشغال روابط الهيدروجين، تميزت هذه النتائج باستمرار التماس والمرونة المحلية، مما ساعد على تحديد الأولويات بين المعقدات لاختبارها تجريبيًا. ولا تُثبت هذه النتائج أن MMP9 أو SRC هما أهداف داخل الخلايا، ولا تُثبت أن أيًا من البروتينين يتوسط الظاهرة المضادة للسرطان للمُركبات.
حساب طاقة الارتباط الحرة باستخدام ميكانيكا الجزيئات ومساحة السطح لبولي-بواسون
تُظهر تقديرات MM-PBSA المحسوبة من مقاطع المسار المتزنة في الشكل 8. وقد أنتج معقد MMP9–المُركب 5 تقديرًا لقيمة ΔG_bind مقداره -19.65 ± 6.43 كيلو كالوري·مول⁻1، بينما أنتج معقد SRC–المُركب 5 قيمة -17.72 ± 6.84 كيلو كالوري·مول⁻1، وأنتج معقد التحكم SRC–المُركب 6 قيمة -10.37 ± 5.61 كيلو كالوري·مول⁻1. وبالتالي، كان الترتيب النسبي للطاقة ضمن هذا البروتوكول الحسابي هو معقد MMP9–المُركب 5، يليه معقد SRC–المُركب 5 ثم معقد SRC–المُركب 6. هذه القيم تمثّل تقديرات تعتمد على الطريقة المستخدمة وتم اشتقاقها من مقطع مسار محدود، ولم يتم تطبيق أي تصحيح للإنتروبيا. لذلك، استُخدمت هذه القيم للمقارنة داخل الدراسة فقط، ولا ينبغي تفسيرها كقيم تجريبية للارتباط الجزيئي أو كدليل على تنظيم وظيفي للبروتين.
من خلال تحليلات الارتباط العابر، والديناميكا الجزيئية، واحتلال التماس، وتقلب الأحماض الأمينية، وMM-PBSA، تم تحديد المركب 5 حسابيًا كمرشح أولي للمتابعة في مركبي MMP9 وSRC. إن التقارب بين هذه الحسابات يعزز المبرر لاختيار هذين الزوجين للتجارب اللاحقة، لكنه لا يؤكد صفة MMP9 أو SRC كأهداف داخل الخلايا مباشرة. وعلى وجه الخصوص، فإن وضعية MMP9 غير التقليدية وغياب إحداث التنسيق مع أيون ZN2⁺ المُثبت تمنع استنتاج آلية تثبيط تقليدية لـMMP9 من البيانات البنيوية الحالية.
الاستنتاجات المستمدة من النتائج
أعطى تدفق العمل الحسابي أولوية لـ 21 هدفًا مرتبطًا بالمرض وتداخلت مع بعضها، وحدد AKT1 وEGFR وTNF وMMP9 وSRC باعتبارها مرشحات مركزية طوبولوجية. وفضّلت التحليلات القائمة على البنية المركب 5 لمتابعته تجريبيًا في معقدي MMP9 وSRC. لا تُظهر هذه النتائج إثباتًا للارتباط المباشر بالهدف، أو تثبيط MMP9 أو SRC، أو تنظيم المسار، أو وجود ارتباط ميكانيكي سببي بين تفاعلات البروتين والتأثير المثبت مسبقًا لاحتجاز المواقع الخالية من القواعد. وبالتالي، تدعم الدراسة مجموعة من الفرضيات الحسابية التي يمكن اختبارها، بدلاً من آلية متعددة الأهداف ضد سرطان الرئة غير صغير الخلايا (NSCLC) تم إثباتها تجريبيًا.
توفر البيانات:
مجموعة البيانات التي تدعم نتائج هذه الدراسة متوفرة للعامة في وانغ X، بينغ Z، شينغ Y، شو L. الترتيب الحوسبي للتفاعلات البروتينية المحتملة الخاصة بالبرودورغات التي تستهدف المواقع الخالية من القواعد الاستجابة للجلوتاثيون في سرطان الرئة غير صغير الخلايا [مجموعة بيانات]. Figshare؛ 2026. doi:10.6084/m9.figshare.33313620.v1.
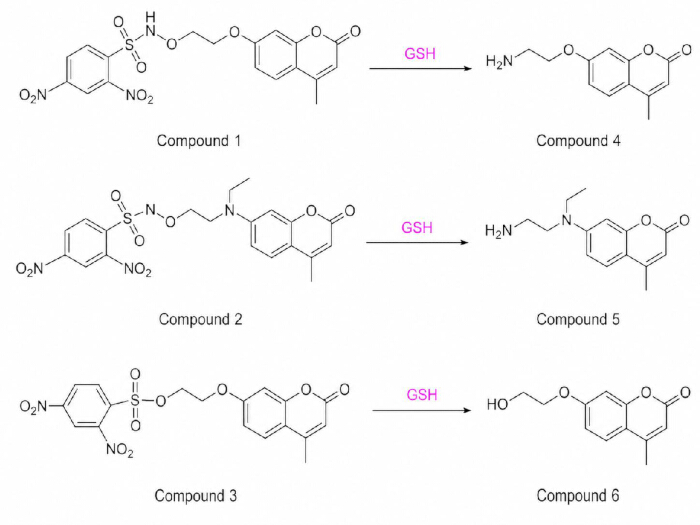
الشكل 1: الهياكل الكيميائية وعلاقات التحول المُحفَّزة بالجلوتاثيون للمركبات المدروسة. المركب 1 والمركب 2 هما دوائيان أوليان يستجيبان للجلوتاثيون ويُفرزان مستقلاَت تحتوي على مجموعة الأمينوأوكسي، وهما المركب 4 والمركب 5 على التوالي. المركب 3 هو مسيطر هيكلي مطابق يستجيب للجلوتاثيون ويُنتج المركب 6، الذي يفتقر إلى وظيفة الارتباط بموقع القاعدة الغير مكتملة الناتج عن وجود مجموعة الأمينوأوكسي. استُخدمت المركبات 1–3 للتنبؤ العكسي بالهدف، والمركب 4 والمركب 5 لارتباط المحور المستهدف، والمركب 6 كرابط سلبي في مقارنة ديناميكا الجزيئات لـ SRC. الاختصارات: SRC، الجين الأولي SRC، كيناز التيروزين غير المستقبل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
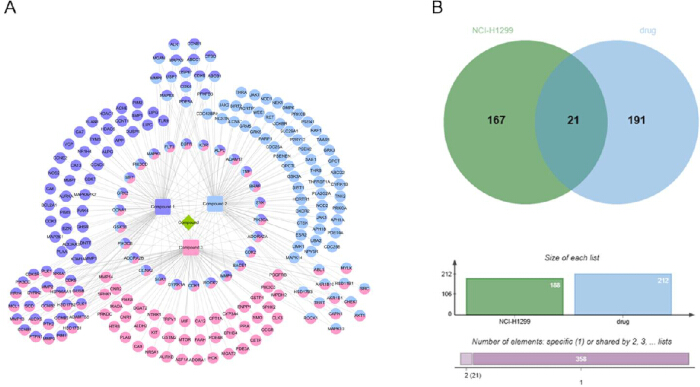
الشكل 2: التقاطع بين الأهداف التنبؤية للمركب والأهداف المرتبطة بسرطان الرئة غير صغير الخلايا. (أ) شبكة ارتباط المركب-الهدف المُنشأة من نتائج التنبؤ العكسي بالأهداف للمركبات 1–3. (ب) مخطط فيين الذي يوضح التداخل بين الأهداف التنبؤية للمركب والأهداف المرتبطة بالمرض المستمدة باستخدام استعلام سرطان الرئة H1299. تم الاحتفاظ بالأهداف المتقاطعة العشرين والواحدة لتحليل تفاعل البروتين-البروتين، وتحليل التخصيب، ثم الترتيب الأولوي القائم على البنية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
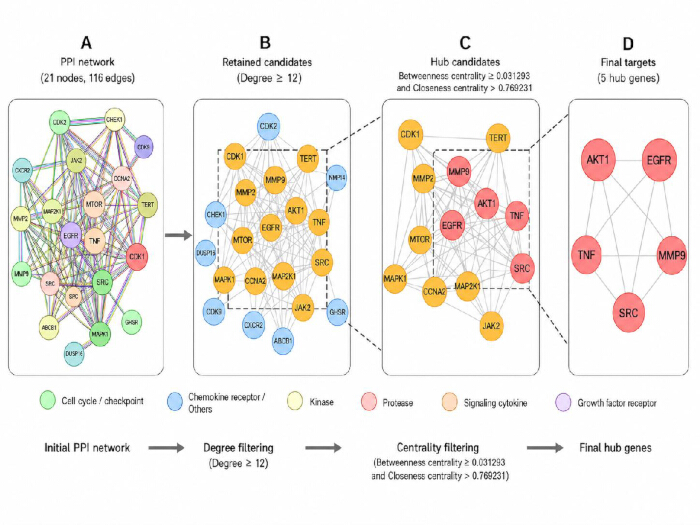
الشكل 3: شبكة تفاعل البروتين-بالبروتين وفحص الأهداف الأساسية. (أ) شبكة تفاعل البروتين-بالبروتين الخاصة بالأهداف المتداخلة الـ 21 (116 اتصالاً). (ب) المرحلة الأولى من الفحص باستخدام معامل الدرجة ≥ 12، والتي حافظت على 13 مرشحاً. (ج) المرحلة الثانية من فحص المرشحين الـ 13 المحفوظين باستخدام معامل المركزية حسب الاتصالية ≥ 0.031293 ومعامل المركزية حسب القرب > 0.769231، والتي أسفرت عن خمسة مرشحين أساسيين. (د) المرشحون الأساسيون الخمسة النهائيون: AKT1، EGFR، TNF، MMP9، وSRC. تم حساب قيم المركزية المستخدمة في المرشحات المتسلسلة على الشبكة الأصلية المكونة من 21 عقدة و116 اتصالاً، ثم نُقلت إلى الأمام دون إعادة الحساب بعد تشكيل كل مجموعة فرعية. الاختصارات: AKT1، كيناز السيرين/ثريونين 1؛ EGFR، مستقبل عامل النمو البطاني؛ TNF، عامل نخر الورم؛ MMP9، ميتالوبروتيناز المصفوفة 9؛ SRC، الجين الأولي للورم SRC، كيناز التيروسين غير المستقبلي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
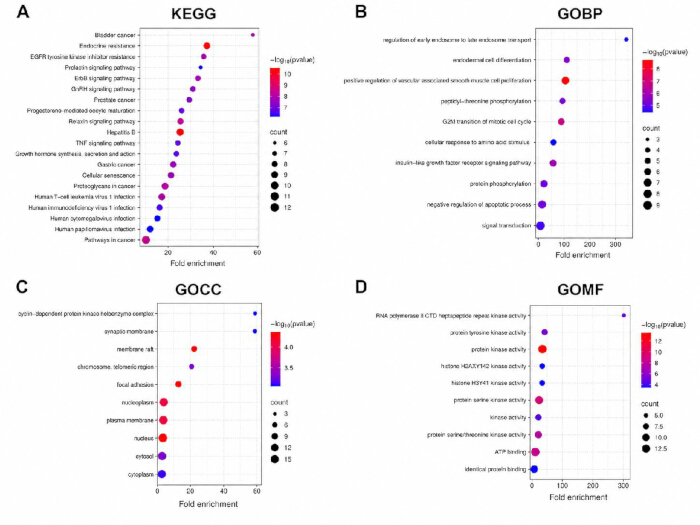
الشكل 4: تحليل إثراء الوظائف للأهداف المتقاطعة. (أ) رسمة فقاعة للمسارات العشرين الأوائل المُثرية من موسوعة كيوتو للجينات والجينوم (KEGG). (ب) رسمة شريطية لأهم 10 مصطلحات مُثرية في عملية الخلية حسب أونتولوجيا الجين (Gene Ontology). (ج) رسمة شريطية لأهم 10 مصطلحات مُثرية في مكونات الخلية حسب أونتولوجيا الجين. (د) رسمة شريطية لأهم 10 مصطلحات مُثرية في الوظيفة الجزيئية حسب أونتولوجيا الجين. يُظهر المحور السيني درجة الإثراء في التمثيل البصري النهائي؛ وحجم الفقاعة في اللوحة (أ) يعكس عدد الجينات. تضمنت جميع مدخلات KEGG وGO الأساسية في الجداول التكميلية 4–7 معيار الإدراج الاسمي p < 0.10؛ أما المسارات/المصطلحات المرسومة فهي الأعلى ترتيبًا حسب القيمة الاحتمالية الاسمية p. ترد القيم المعدلة لاختبارات المتعددة في الجداول التكميلية ولكن لم تُستخدم في الإدراج. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
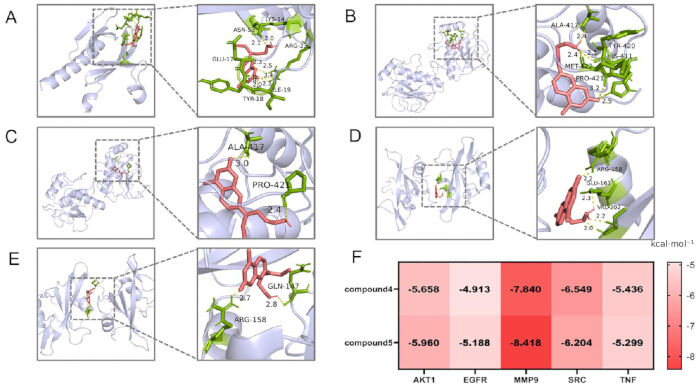
الشكل 5: مواضع الارتباط الجزيئي ونتائج برنامج AutoDock Vina للمركب 4 والمركب 5 مع البروتينات ذات الأولوية. (أ) موضع الارتباط المتوقع للمركب 5 مع AKT1. (ب) موضع الارتباط المتوقع للمركب 4 مع MMP9. (ج) أعلى موضع متوقع للمركب 5 مع MMP9؛ والاتصالات المعروضة قريبة من Ala417 وPro421، في حين لا تُسجَّل أي تنسيق مباشر مع أيون ZN2⁺ المحفز أو اتصال مباشر مع His401 أو Glu402 أو His405 أو His411. وبالتالي، لا يُقدَّم هذا الموضع كنمط ارتباط مثبط نموذجي لـMMP9. ويُقدَّم في الشكل التكميلي 3 مقارنة بخريطة تفاعل مرجعية مع بنية بلورة MMP9 المرتبط بـNFH (PDB 1GKC)، بما في ذلك المسافات البلورية لتنسيق ZN2⁺. (د) موضع الارتباط المتوقع للمركب 4 مع SRC. (هـ) موضع الارتباط المتوقع للمركب 5 مع SRC. (و) خريطة حرارية لنتائج ارتباط برنامج AutoDock Vina (kcal·mol⁻1) للمركب 4 والمركب 5 مقابل البروتينات الخمسة ذات الأولوية. تشير القيم الأكثر سلبية إلى نتائج Vina الأكثر تفضيلًا ضمن هذا البروتوكول الارتقائي؛ ولا تمثل هذه النتائج قياسات تجريبية للارتباط. الاختصارات: AKT1، كيناز السيرين/الثريونين AKT1؛ MMP9، ماتريكس ميتالوبروتيناز 9؛ NFH، N2-[(2R)-2-{[فورمِل(هيدروكسي)أمينو]ميثيل}-4-ميثيلبنتانويل]-N،3-دايميثيل-L-فاليناميد؛ SRC، جين الأولي المسرطِن SRC، كيناز التيروزين غير المستقبلي؛ PDB، قاعدة بيانات البروتين؛ Ala، ألانين؛ Pro، برولين؛ His، هيستيدين؛ وGlu، جلوتامات. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
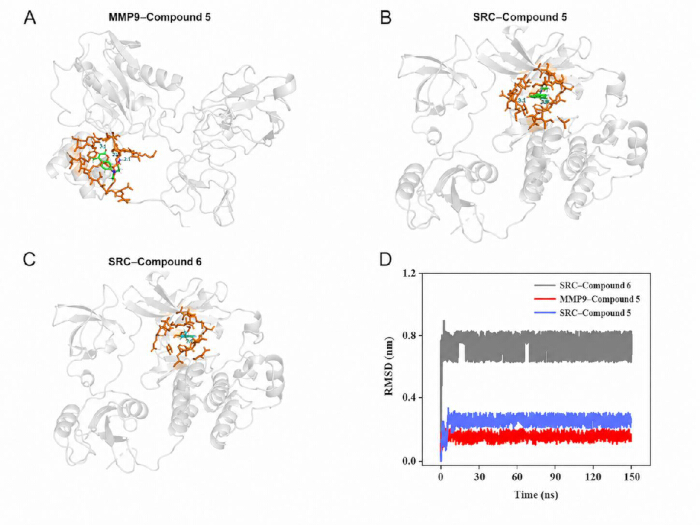
الشكل 6: نظرة هيكلية عامة وتحليل استقرار الليجاند لمركبات الديناميكا الجزيئية. (أ) تكوين الارتباط الأولي للمركب 5 مع MMP9 المستخدم كبنية أولية للديناميكا الجزيئية. (ب) التكوين الأولي للارتباط للمركب 5 مع SRC (PDB 2H8H). (ج) التكوين الأولي للارتباط للمركب 6 مع SRC (PDB 2H8H)؛ المركب 6 هو ناتج تحلل الجلوتاثيون للمركب الضابط 3 ويفتقر إلى وظيفة الربط بالأماكن غير القاعدية ذات الأوكسي أمينو. (د) انحراف الجذر التربيعي المتوسط للليجاند بالنسبة لوضع الارتباط الأولي على طول مسارات الديناميكا الجزيئية البالغة 150 نانوثانية لكل من MMP9–المركب 5 وSRC–المركب 5 وSRC–المركب 6. يقارن هذا المقطع استمرارية الوضع خلال الديناميكا الجزيئية ولا يوضح الارتباط بالهدف داخل الخلية. الاختصارات: MD، الديناميكا الجزيئية؛ MMP9، ميتالوبروتيناز المصفوفة 9؛ SRC، الجين الأولي السرطاني SRC، كيناز التيروزين غير المستقبلي؛ PDB، بنك بيانات البروتين؛ RMSD، انحراف الجذر التربيعي المتوسط. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
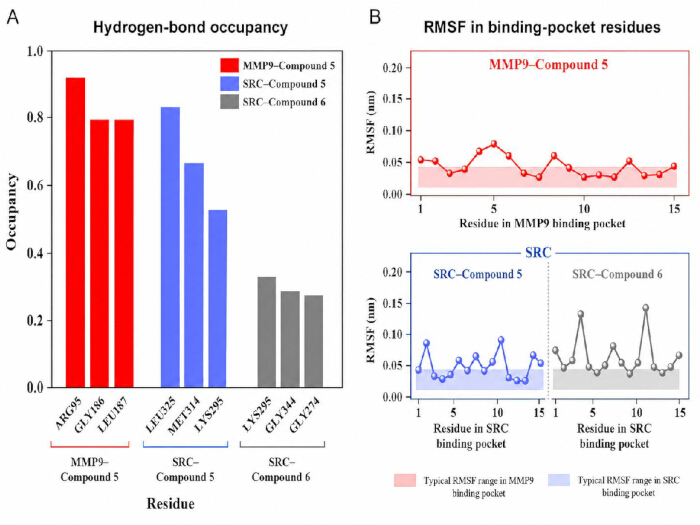
الشكل 7: خصائص التفاعل الديناميكي أثناء تحليل الديناميكا الجزيئية. (أ) احتلال الروابط الهيدروجينية النموذجية بين الجزيء المرتبط والبروتين خلال مسارات 150 نانوثانية لأنظمة MMP9–المركب 5، وSRC–المركب 5، وSRC–المركب 6. (ب) تقلب الجذر المتوسط التربيعي لبقايا الجيب الارتباطي. ويُفسَّر الملف الشخصي لـ MMP9 ضمن نظام MMP9، في حين تُقدِّم الملفات الشخصية لـ SRC–المركب 5 وSRC–المركب 6 مقارنة مباشرة ضمن نظام SRC. تصف هذه التحليلات استمرارية التماس وحركة المرنة المحلية أثناء الديناميكا الجزيئية، لكنها لا تُظهِر ارتباط الهدف داخل الخلية أو التعديل الوظيفي لـ MMP9 أو SRC. الاختصارات: MD، الديناميكا الجزيئية؛ MMP9، ماتريكس ميتالوبروتيناز 9؛ SRC، جين الأولي-السرطان SRC، كيناز التيروسين غير المستقبلي؛ RMSF، تقلب الجذر المتوسط التربيعي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
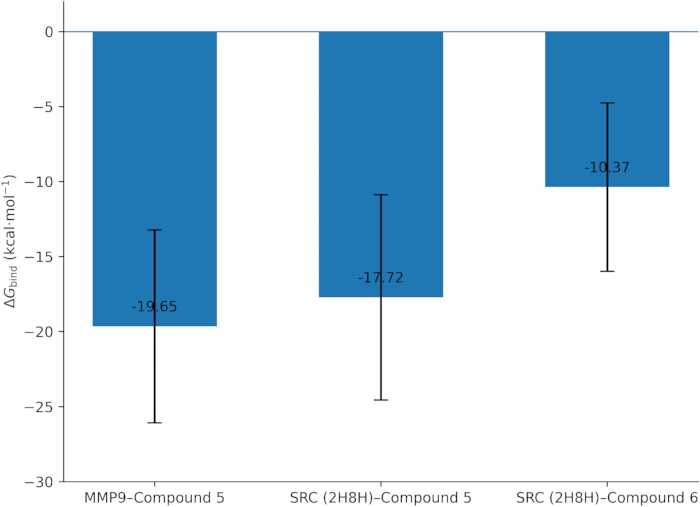
الشكل 8: التقديرات الطاقوية لطريقة الميكانيكا الجزيئية لمعادلة بواسون-بولتزمان ومساحة السطح للمركبات المعقدة المُحلَّلة. قيم ΔG_bind المُقدَّرة التي تم الحصول عليها باستخدام طريقة الميكانيكا الجزيئية لمعادلة بواسون-بولتزمان ومساحة السطح من مقاطع المسار المتزنة للمركبات المعقدة التالية: MMP9–المُركَّب 5، وSRC (PDB 2H8H)–المُركَّب 5، وSRC (PDB 2H8H)–المُركَّب 6. تُقدَّم القيم كمتوسط ± الانحراف المعياري وتُستخدم للمقارنة النسبية ضمن الدراسة، وليس كقيم تجريبية لشدة الارتباط. يستخدم الشكل 8 تسمية المحور الصادي ΔG_bind (kcal·mol⁻1)، بما يتوافق مع المعادلة والمصطلحات المستخدمة في القسمين: الطرق والنتائج. الاختصارات: MMP9، ماتريكس ميتالوبروتيناز 9؛ SRC، الجين الأولي المسرطن SRC، كيناز التيروسين غير المستقبلي؛ PDB، بنك بيانات البروتينات؛ ΔG_bind، طاقة الربط الحرة؛ MM-PBSA، الميكانيكا الجزيئية لمعادلة بواسون-بولتزمان ومساحة السطح. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| المركب | AKT1 (kcal·mol⁻¹) | EGFR (kcal·mol⁻¹) | MMP9 (kcal·mol⁻¹) | SRC (kcal·mol⁻¹) | TNF (kcal·mol⁻¹) |
| المركب 4 | -5.658 | -4.913 | -7.840 | -6.549 | -5.436 |
| المركب 5 | -5.960 | -5.188 | -8.418 | -6.204 | -5.299 |
الجدول 1: درجات الارتباط باستخدام برنامج AutoDock Vina للمركب 4 والمركب 5 مع البروتينات الخمسة ذات الأولوية. درجات الارتباط باستخدام برنامج AutoDock Vina (kcal·mol⁻1) للمركب 4 والمركب 5 مع AKT1 وEGFR وMMP9 وSRC وTNF. تشير القيم الأكثر سلبية إلى درجات أكثر تفضيلًا ضمن بروتوكول الارتباط المحدد. هذه القيم هي درجات حسابية ولا ينبغي وصفها بأنها طاقات ارتباط حرّة أو تآلفات مُقاسَة تجريبيًا. الاختصارات: AKT1، كيناز السيرين/ثريونين 1 من نوع AKT؛ EGFR، مستقبل عامل النمو البطاني؛ MMP9، معدن بروتيناز المصفوفة 9؛ SRC، الجين الأولي للورم SRC، كيناز التيروسين غير المستقبلي؛ TNF، عامل نخر الورم.
الشكل التكميلي 1: المقارنة البنيوية بين مركب مرجع MMP9–NFH البلوري وأفضل موضع ارتباط لمركب MMP9–المركب 5. (أ) بيئة أيون الزنك الحفازة ZN2⁺ في المركب المرجعي MMP9–NFH (PDB 1GKC)، ويُظهر الأحماض الأمينية His401 وHis405 وHis411 وGlu402، بالإضافة إلى المسافات التناسقية لـNFH الموضحة. (ب) أفضل موضع ارتباط للمركب 5 ويُظهر التماسات Ala417 وPro421 الموضحة. (ج) عرض بُعدي ثلاثي بديل لنفس موضع ارتباط المركب 5. تُقدَّم هذه المقارنة كمرجع بنيوي ولا تُثبت تثبيط MMP9. الاختصارات: MMP9، ميتالوبروتيناز المصفوفة 9؛ NFH، N2-[(2R)-2-{[فورميل(هيدروكسي)أمينو]ميثيل}-4-ميثيلبنتانوي]-N,3-ثنائي ميثيل-L-فاليناميد؛ PDB، قاعدة بيانات البروتين؛ Ala، ألانين؛ Pro، بروتين؛ His، هيستيدين؛ Glu، جلوتامات.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 2: انحراف الجذر التربيعي المتوسط للهيكل العظمي للبروتين خلال تحليل الديناميكا الجزيئية. ملفات تعريف الانحراف الجذري التربيعي المتوسط للهيكل العظمي للبروتين للأنظمة MMP9–المُركب 5، SRC (PDB 2H8H)–المُركب 5، وSRC (PDB 2H8H)–المُركب 6 على طول مسارات الديناميكا الجزيئية الكاملة. يستخدم الرسم البياني النهائي التسميات الموحّدة MMP9–المُركب 5، SRC–المُركب 5، وSRC–المُركب 6، مع محورين يُبلَغان بوحدات RMSD (nm) والزمن (ns). تصف هذه الملفات السلوك التشكلّي المعتمد على الزمن خلال الديناميكا الجزيئية، ولا ينبغي تفسيرها كدليل على الارتباط الخلوي أو تنظيم البروتين. الاختصارات: MMP9، ميتالوبروتيناز المصفوفة 9؛ SRC، الجين الأولي للسرطان SRC، كيناز التيروسين غير المستقبل؛ PDB، بنك بيانات البروتين؛ RMSD، الانحراف الجذري التربيعي المتوسط؛ MD، الديناميكا الجزيئية.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 3: مقارنة الموقع التحفيزي للـ ZN في MMP92⁺ البيئة في المركب المرجعي 1GKC-NFH ووضع الارتباط المرتبة الأولى للمركب 5. في المركب المرجعي البلوري MMP9–NFH (PDB 1GKC)، تنسق His401 وHis405 وHis411 أيون الزنك الحفزي2⁺ عند 2.21، 2.23، و2.22 Å، على التوالي، وتتآثر ذرتا أكسجين من NFH مع ZN2⁺ عند 2.07 و 2.38 Å؛ وغلو402 هو بقايا الحمض/القاعدة الحفازة. على النقيض من ذلك، فإن خريطة التفاعل الخاصة بالمركب 5 المرتبة العليا المحفوظة تُظهر تفاعلات مع ألا417 (3.0 Å) وPro421 (2.4 Åولكن بدون صورة مباشرة مُعلَّمة لـ ZN2⁺ الارتباط أو التماس المباشر مع His401، Glu402، His405، أو His411. وعليه، لا يوجد مركب 5-ZN2⁺ تم تعيين مسافة التناسق. يدعم هذا المقارنة تصنيف وضع المركب 5 كارتباط متوقع غير نمطي بدلاً من نمط ارتباط مثبط نمطي يعتمد على الزنك. الاختصارات: MMP9، ميتالوبروتيناز المصفوفة 9؛ PDB، قاعدة بيانات البروتينات؛ Ala، ألانين؛ Pro، بروتين؛ His، هيستيدين؛ Glu، جلوتامات.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 1: المقاييس الطوبولوجية لشبكة التفاعل البروتين-بروتين الأولية المكونة من 21 عقدة و116 حافة. المعلمات الطوبولوجية لجميع العقد المستهدفة المتقاطعة وعددها 21 قبل إجراء التصفية القائمة على المركزية، وتشمل متوسط طول أقصر مسار، مركزية الوسيطية، مركزية القرب، معامل التكتل، الدرجة، الانحراف، اتصال الجوار، الشعاعية، الإجهاد، والمعامل الطوبولوجي. مجموع درجات العقد يساوي 232، وهو ما يقابل 116 حافة غير موجهة.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 2: المقاييس الطوبولوجية للشبكة الأصلية للمرشحين الثلاثة عشر الذين تم الاحتفاظ بهم بعد التصفية القائمة على الدرجة. المعلمات الطوبولوجية للعُقد الثلاثة عشر التي تم الاحتفاظ بها بعد تطبيق معيار الدرجة على الشبكة الأولية المكونة من 21 عقدة و116 حافة. هذه القيم تمثل مقاييس الشبكة الأصلية المكونة من 21 عقدة و116 حافة، والتي تم نقلها إلى خطوة التصفية اللاحقة القائمة على المركزية حسب الاعتدال والمركزية حسب القرب؛ ولم يتم إعادة حسابها على شبكة فرعية مكونة من 13 عقدة.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 3: المقاييس الطوبولوجية للشبكة الأصلية للمرشحين الخمسة النهائيين للمحور بعد التصفية التسلسلية. المعلمات الطوبولوجية الأصلية للشبكة المكونة من 21 عقدة و116 حافة بالنسبة للمرشحين الخمسة النهائيين للمحور، AKT1 وEGFR وTNF وMMP9 وSRC، الذين تم الاحتفاظ بهم بعد التصفية التسلسلية. هذه القيم التي تم نقلها تدعم الترتيب حسب الأولوية القائم على الشبكة فقط، ولا تمثل مقاييس تم حسابها مجددًا على شبكة فرعية مكونة من خمس عقد، ولا تؤكد هذه البروتينات كأهداف دوائية تم التحقق منها تجريبيًا. الاختصارات: AKT1، كيناز السيرين/ثريونين 1 الخاص بـ AKT؛ EGFR، مستقبل عامل النمو البطاني؛ TNF، عامل نخر الورم؛ MMP9، ميتالوبروتيناز المصفوفة 9؛ SRC، الجين الأولي للسرطان SRC، كيناز التيروسين غير المستقبلي.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 4: نتائج تثبيت الكنسيكي الكاملة لموسوعة كيوتو للجينات والجينوم لـ 121 مسارًا تحققت فيها الدلالة الاسمية p < معيار الإدراج 0.10 إحصائيات إثراء كيوتو الكاملة لموسوعة الجينات والجينوم لجميع المسارات الـ121 المحفوظة بين الأهداف المتقاطعة الـ21 (اسمية p < 0.10)، بما في ذلك نسبة الجينات، وعدد الجينات، والمجموع الكلي للقائمة، والإصابات في المجموعة السكانية، والمجموع الكلي للسكان، pالقيم، قيم بنجاميني، التثبيط التراكمي، قيم بونفروني، معدلات اكتشاف الأخطاء، وقيم اختبار فيشر الدقيق. يتم تمثيل أعلى 20 مسارًا مرتبةً بصريًا في الشكل 4A. الاسمي pمعيار القيمة المُعرَّف يُحدد الإدراج؛ وتُقدَّم قيم بنجاميني، وبونفروني، ومعدل الاكتشاف الكاذب من أجل الشفافية، ولم تُستخدم لتحديد المجموعة المحفوظة.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 5: نتائج إثراء العمليات البيولوجية لهوية الجينات (177 مصطلحًا تحققت من الدلالة الاسمية p < 0.10). إحصائيات التثري الكاملة لجميع مصطلحات العمليات البيولوجية في تسلسل جو (Gene Ontology) البالغ عددها 177 مصطلحاً (p الاسمية < 0.05) المحفوظة بعد التصحيح على مستوى العائلة من أجل اكتشاف المعدلات (FDR) عند α = 0.05 < ٠.١٠)، بما في ذلك نسبة الجينات، وعدد الجينات، والمجموع الكلي للقائمة، والإصابات في المجموعة السكانية، والمجموع الكلي للسكان، pالقيمة، قيمة بنجاميني، التثبيط المطوي، قيمة بونفروني، معدل اكتشاف الأخطاء، وقيمة اختبار فيشر الدقيق. يتم تمثيل المصطلحات العشرة الأعلى ترتيبًا بصريًا في الشكل 4B. القيمة الاسمية pمعيار القيمة حدد الشمول؛ وتُقارَر القيم المعدلة لأغراض الشفافية، ولم تُستخدَم لتحديد المجموعة المحفوظة.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 6: نتائج إثراء المكونات الخلوية في تسلسل وظائف الجينات الكامل (29 مصطلحًا استوفت قيمة p الاسمية < 0.10). إحصائيات الإثراء الكاملة لكل المصطلحات الـ29 للمكونات الخلوية في تسلسل وظائف الجينات (القيمة الاسمية p < 0.10)، متضمنة نسبة الجينات، وعدد الجينات، والمجموع الكلي للقائمة، وعدد الإصابات في المجموعة السكانية، والمجموع السكاني الكلي، والقيمة p، وقيمة بنجاميني، ودرجة الإثراء، وقيمة بونفروني، ومعدل اكتشاف الأخطاء، وقيمة اختبار فيشر الدقيق. تم تمثيل أعلى 10 مصطلحات تصنيفًا في الشكل 4C. تم تحديد المعايير بناءً على قيمة p الاسمية؛ بينما تم الإبلاغ عن القيم المعدلة لأغراض الشفافية، دون استخدامها في تحديد المجموعة المحفوظة.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 7: نتائج إثراء الوظيفة الجزيئية لعلم الوراثة الوظيفي الكاملة (61 مصطلحًا تحققت فيها قيمة p الظاهرة < 0.10). إحصائيات الإثراء الكاملة لجميع المصطلحات الـ61 المحفوظة في علم الوراثة الوظيفي للوظيفة الجزيئية (قيمة p الظاهرة < 0.10)، بما في ذلك نسبة الجينات، وعدد الجينات، والمجموع الكلي للقائمة، وعدد التوافق في المجموعة السكانية، والمجموع السكاني الكلي، وقيمة p، وقيمة بنجاميني، ودرجة الإثراء، وقيمة بونفروني، ومعدل اكتشاف الأخطاء، وقيمة اختبار فيشر الدقيق. تم توضيح أعلى 10 مصطلحات مرتبة في الشكل 4D. تم تحديد المعايير بناءً على قيمة p الظاهرة التي تحدد الإدراج؛ بينما تم الإبلاغ عن القيم المعدلة لأغراض الشفافية، دون استخدامها في تحديد المجموعة المحفوظة.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
يجب تفسير الدراسة الحالية ضمن إطار ميكانيكي يتكون من مستويين. المستوى الأول مدعوم بعمل تجريبي سابق: حيث يؤدي التنشيط المستجيب للجلوتاثيون إلى تحرير نوع يحتوي على الأمينو-أوكسي يمكنه اقتناص المواقع غير القاعدية الألدهيدية، وقد أظهرت هذه الفئة من المركبات سمية خلوية انتقائية، وتأثيرات على الدورة الخلوية، وموتًا خلويًا مبرمجًا في خلايا H1299. أما المستوى الثاني فهو استكشافي ويمثل محور العمل الحالي: حيث تشير تنبؤات الأهداف الحاسوبية والتحليلات القائمة على البنية إلى أن السلسلة الكيميائية نفسها قد تكون متوافقة أيضًا مع بروتينات مختارة مرتبطة بالسرطان. ولا توجد تجربة في هذه الدراسة تثبت حدوث التفاعلات البروتينية المتوقعة داخل الخلايا أو أنها كانت عواقب لاحقة لاقتناص المواقع غير القاعدية. وبناءً على ذلك، فقد تم الفصل بين المستويين عمدًا بدلاً من دمجهما في آلية مثبتة متعددة الأهداف.
على مستوى الشبكة، كانت الأهداف الـ 21 المتقاطعة مثرية في المسارات المرتبطة بالسرطان والمقاومة، واحتلت البروتينات AKT1 و EGFR و TNF و MMP9 و SRC مواقع مركزية في شبكة PPI. وتعد هذه النتائج مفيدة لتحديد أولويات المرشحين، إلا أن مركزية الشبكة والإثراء لا يمكنهما إثبات أن المركب يرتبط فعلياً ببروتين ما أو يغير مساراً معيناً. لذا، ينبغي اعتبار البروتينات المحورية (hub proteins) مرشحة للتحقق المستهدف. ويتطلب إثبات الدور الوظيفي إجراء تجارب اضطراب مباشر أو تجارب ارتباط بالهدف في نفس الخط الخلوي لـ NSCLC المستخدم لقياس النمط الظاهري الخلوي.
يوضح البروتين MMP9 سبب أهمية هذا التمييز؛ فقد حقق المركب 5 أفضل درجة إرساء منفردة مع MMP9، إلا أن خريطة التفاعل للوضعية العليا المستبقاة لم تشر إلى وجود تنسيق مباشر مع أيون الزنك (Zn) التحفيزي.2+ أو الارتباط المباشر بـ His401، أو Glu402، أو His405، أو His411. وفي المرجع البلوري 1GKC، يقوم كل من His401 وHis405 وHis411 بتنسيق Zn2+ عند 2.21، و2.23، و2.22 Å، بينما تنسق ذرتا الأكسجين في NFH مع Zn2+ عند 2.07 و2.38 Åيعتبر Glu402 هو الثمالة الحمضية/القاعدية الحفازة. وفي المقابل، أظهرت خريطة المركب 5 (Compound 5) وجود تلامسات بالقرب من Ala417 و Pro421. الشكل التكميلي 3 تعرض مقارنة خريطة التفاعل المرجعية. ونظراً لأن مركب Compound 5-Zn المباشر2+ لم يتم تدوين التناسق، ولا يوجد مركب 5-Zn2+ تم تعيين مسافة التنسيق. وبناءً على ذلك، فإن النتيجة الهيكلية الحالية توصف بأنها ارتباط متوقع غير نمطي مع MMP9، وليست دليلاً على تثبيط الموقع التحفيزي. أما مسار محاكاة الديناميكيات الجزيئية (MD) اللاحق، فهو يختبر فقط ما إذا كانت وضعية الإرساء المحددة تلك تظل مستقرة بمرور الوقت؛ ولا يمكنه تحويل هندسة إرساء غير نمطية إلى دليل على التثبيط الإنزيمي.36,37وبناءً على ذلك، ينبغي أن يظل MMP9 مرشحاً للاختبار الكيميائي الحيوي بدلاً من أن يكون هدفاً رئيسياً أو مُثبتاً. وقد نُوقش MMP9 على نطاق واسع فيما يتعلق بغزو السرطان، وإعادة تشكيل البيئة الدقيقة للورم، والاستراتيجيات العلاجية الموجهة ضد MMP9.38,39.
ينطبق نفس الحد الأدلي من الأدلة على SRC. أظهر مسار SRC–Compound 5 تلامسات أكثر استمراراً من تحكم SRC–Compound 6، إلا أن استقرار محاكاة الديناميكا الجزيئية (MD) لا يعادل إشغال الهدف داخل الخلايا40,41. يوفر استخدام Compound 6 مقارنة متكافئة لمنتج الانشطار غير المحتجز ويعزز المقارنة الهيكلية الداخلية، ومع ذلك، فإن هذا لا يثبت أن وظيفة aminooxy هي المسؤولة عن ارتباط SRC أو أن إشارات SRC قد تغيرت في الخلايا. وسيكون من الضروري إجراء تقييم مباشر لإجمالي SRC، ونسبة p-SRC/SRC، وعلامات الإشارات النهائية، وقياسات اشتباك الهدف المتعامدة لدعم مثل هذا الادعاء.
وبالمثل، توفر طريقة MM-PBSA تقديرًا طاقيًا نسبيًا للمسارات التي تم أخذ عينات منها بدلاً من قياس تجريبي للألفة. وتتوافق التقديرات الأكثر ملاءمة لـ MMP9–Compound 5 و SRC–Compound 5 مقارنة بـ SRC–Compound 6 مع ملاحظات المسارات المقارنة، إلا أن الحسابات حساسة لحيّز التشكلات التي تم أخذ عينات منها والتقريبات المنهجية، ولم يتضمن التحليل الحالي تصحيحًا للإنتروبيا. وبناءً على ذلك، فإن التوافق بين عمليات الإرساء (docking) والديناميكا الجزيئية (MD) وطريقة MM-PBSA يزيد فقط من الاتساق الحسابي الداخلي؛ ولكنه لا يثبت التعديل الوظيفي لـ MMP9 أو SRC.
لا تزال العلاقة بين حبس المواقع غير القاعدية والتفاعلات البروتينية المتوقعة غير محسومة. أحد الاحتمالات هو أن هيكل الأمينوكسي المتحرر بواسطة الجلوتاثيون يحتفظ بنشاطه المعروف في حبس آفات DNA، وفي الوقت نفسه يكون له تفاعلات موازية ومستقلة مع بروتينات مختارة. وهناك احتمال آخر وهو أن بعض التفاعلات البروتينية المتوقعة لا تحدث في التركيزات ذات الصلة بيولوجياً أو لا تساهم في النمط الظاهري. ولا يمكن للبيانات الحالية التمييز بين هذه الاحتمالات. إن إثبات وجود جسر ميكانيكي يتطلب قياساً متزامناً لاستجابات تلف DNA وتغيرات المسار البروتيني بعد المعالجة بالمركب، تليها تجارب اضطراب تثبت أن تغيير هدف مرشح يؤدي إلى تغيير النمط الظاهري المضاد للسرطان.
يجب إجراء التحقق التجريبي مستقبلاً في خلايا H1299، وهو نفس النموذج الخلوي المستخدم في التوصيف التجريبي السابق لهذه السلسلة الكيميائية. ستعتمد الاستراتيجية المرحلية أولاً على مقارنة المركب Compound 5 مع المذيب (vehicle) والمركب غير الحاصد المقابل Compound 6 باستخدام مقايسات حيوية الخلايا استجابةً للتركيز، وموت الخلايا المبرمج (apoptosis)، ودورة الخلية، والهجرة/الغزو، ومقايسات γH2AX لتحديد السياق المظهري وسياق تلف الحمض النووي42. بعد ذلك، ينبغي فحص MMP9 عن طريق تحليل زيموغرافي للجيلاتين وتحليل التعبير البروتيني، بينما يتم تقييم إشارات SRC من خلال إجمالي SRC وSRC المفسفر عند Tyr416، مع استخدام نسبة p-SRC/SRC كمؤشر أساسي للإشارات. كما يجب تقييم الارتباط المباشر بين المركب والبروتين بشكل مستقل باستخدام طريقة متعامدة للتحقق من الارتباط بالهدف مثل رنين البلازمون السطحي43. ولا ينبغي اعتبار التفاعل المرشح مدعوماً تجريبياً إلا عندما يتوافق دليل الارتباط المباشر مع القراءة الوظيفية الخلوية المقابلة. ومن شأن الاضطراب الجيني أو الدوائي لـ MMP9 أو SRC أن يوفر اختباراً إضافياً لما إذا كان أي من المرشحين يساهم سببياً في المظهر الظاهري لخلايا H1299. يحافظ هذا الإطار المرحلي على التمييز بين نشاط حصر المواقع غير القاعدية الذي تم إثباته سابقاً وبين فرضيات التفاعل مع MMP9/SRC التي تم تحديد أولويتها حسابياً، مع تحديد مسار مباشر للاختبار التجريبي اللاحق.
الإفصاحات
يصرح المؤلفون بعدم وجود أي مصالح مالية متضاربة أو تضاربات أخرى في المصالح تتعلق بهذا العمل. ولم يكن للممولين أي دور في تصميم الدراسة، أو في جمع البيانات أو تحليلها أو تفسيرها، أو في كتابة المخطوطة، أو في قرار نشر النتائج.
شكر وتقدير
تم دعم هذا العمل من قبل مشروع الشباب التابع لإدارة التعليم بمقاطعة لياونينغ (JYTQN2023441)، ومشروع بدء أبحاث الدكتوراه التابع للصندوق المشترك لمقاطعة لياونينغ في إدارة العلوم والتكنولوجيا (2023-BSBA-151)، ومشروع دعم المواهب العلمية والتكنولوجية الشابة بجامعة جينزو الطبية (JYQT202305). تم استخدام ChatGPT (OpenAI) أثناء مراجعة المخطوطة للتحرير اللغوي والتنظيم ودعم المراجعة. وقد قام المؤلفون بمراجعة والتحقق من المحتوى العلمي وتفسير البيانات والصياغة النهائية، ويتحملون المسؤولية الكاملة عن المخطوطة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| ACPYPE | مطورو ACPYPE / Bio2Byte | الإصدار 2023.11.14 | توليد ملفات طوبولوجيا الربيطات ذات الجزيئات الصغيرة وتحويلها إلى تنسيق متوافق مع GROMACS. |
| AmberTools (Antechamber) | فريق تطوير AMBER | AmberTools 23.3 | تعيين الشحنات الجزئية بطريقة AM1-BCC وتوليد بارامترات الرابطة باستخدام GAFF2. |
| AutoDock Vina | مختبر فورلي، معهد سكريپس للأبحاث | الإصدار 1.2.5 | الرسو الجزيئي وتوليد وضعيات مرتبة للبروتين والربيطة. |
| AutoDockTools (MGLTools) | مركز البيولوجيا التركيبية الحسابية، Scripps Research | الإصدار 1.5.7 | تحضير المستقبل والرابط، وتعيين شحنة غاستيغر، وتحديد الروابط القابلة للدوران، والتحويل إلى صيغة PDBQT. |
| برنامج BIOVIA Discovery Studio Visualizer | Dassault Systèmesèنظم BIOVIA | إصدار ٢٠٢٥ | تصوير هيئة الإرساء وفحص التفاعل بين البروتين والرابط. |
| مجال القوة CHARMM36 | مختبر ماكيريل / مطورو حقل القوة CHARMM | CHARMM36 | تحديد معاملات البروتين لحسابات الديناميكا الجزيئية؛ استُخدم CHARMM36 بشكل متسق طوال الدراسة (وليس CHARMM36m). |
| Chem3D Ultra (ChemOffice Professional) | برنامج Revvity Signals | الإصدار 22.2 | تقليل طاقة الربيطة باستخدام حقل القوة MMFF94. |
| المركبات 1–6 | تم تخليقه مسبقاً كما هو موضح في دراسة Li et al.، مجلة ACS Chemical Biology (2022) | بما أنك لم توفر نصاً للمصدر، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته، وسأقوم بصياغته بدقة واحترافية وفقاً للمعايير العلمية والأكاديمية المحددة في تعليماتك. | الأدوية الأولية الأم المستجيبة للجلوتاثيون، والنواتج المتحررة، وزوج التحكم المطابق غير المحتجز المستخدم في سير العمل الحسابي. |
| cytoHubba | مطورو cytoHubba / متجر تطبيقات Cytoscape | الإصدار 0.1 | تحليل الدرجة، ومركزية البينية، ومركزية القرب لتحديد أولويات المحاور والأهداف. |
| سايتو-سكيب (Cytoscape) | اتحاد سيتوسكيب (Cytoscape Consortium) | الإصدار 3.10.0 | تصوير شبكات المركب-الهدف وتفاعلات البروتين-بروتين وتحليل الطوبولوجيا. |
| موارد DAVID للمعلوماتية الحيوية | مختبر الفيروسات القهقرية البشرية والمعلوماتية المناعية، المختبر الوطني في فريدريك لأبحاث السرطان | مورد إلكتروني | تحليل إثراء الوجودية الجينية (Gene Ontology) ومسارات KEGG؛ القيمة الاحتمالية الاسمية (nominal p) &استُخدمت القيمة p < 0.10 كمعيار اشتمال استكشافي؛ وقد تم تسجيل القيم المعدلة ولكن لم تُستخدم لتحديد المجموعة المستبقاة. |
| GAFF2 | فريق تطوير AMBER | GAFF2 | تحديد معاملات حقل القوة للّيغاند. |
| قاعدة بيانات الجينات البشرية GeneCards | مجموعة GeneCards / شركة LifeMap Sciences, Inc. / معهد وايزمان للعلوم | مورد إلكتروني | استرجاع الأهداف المرتبطة بالمرض باستخدام استعلام "lung cancer H1299". |
| gmx_MMPBSA | فريق تطوير gmx_MMPBSA | الإصدار 1.6.3 | حسابات الطاقة الحرة للارتباط بطريقة MM-PBSA من مسارات الديناميكيات الجزيئية لبرنامج GROMACS؛ حيث تم أخذ عينات من 500 إطار من 100.0–١٤٩.٩ نانو ثانية بفواصل زمنية قدرها ١٠٠ بيكو ثانية، مع استبعاد نقطة النهاية عند ١٥٠.٠ نانو ثانية؛ ولم يتم تطبيق تصحيح الإنتروبيا. |
| GROMACS | فريق تطوير GROMACS | الإصدار 2024.4 | توليد مسار الديناميكا الجزيئية وتحليل المسار. |
| منصة Microbioinfo للتصور المرئي عبر الإنترنت | شركة شنغهاي نيوكور للتكنولوجيا الحيوية المحدودة / Microbioinfo | مورد ويب | إنشاء المخططات الشريطية للإثراء ومخططات الفقاعات. |
| أوبن بابيل (Open Babel) | فريق تطوير Open Babel | الإصدار 3.1.1 | تحويل ملفات البنية إلى صيغة SMILES القياسية للإدخال في SwissTargetPrediction. |
| PubChem | المركز الوطني لمعلومات التقانة الحيوية، المكتبة الوطنية الأمريكية للطب، المعاهد الوطنية للصحة | مورد إلكتروني | استرجاع البنى ثلاثية الأبعاد للرابطات. |
| نظام PyMOL للرسوميات الجزيئية | شْرödinger, LLC | الإصدار 2.5.4 | تحضير البروتين، والتصور البنيوي، وفحص وضعية الالتحام. |
| بنك بيانات البروتينات RCSB | مختبر أبحاث المعلوماتية الحيوية البنيوية (RCSB) | معرفات PDB: 3O96؛ 5UWD؛ 2AZ5؛ 1GKC؛ 2H8H | استرجاع البنية البروتينية لكل من AKT1 وEGFR وTNF وMMP9 وSRC، على التوالي. |
| يرجى تزويد النص المراد ترجمته. | اتحاد STRING | الإصدار 11.5 | بناء شبكة تفاعلات البروتين-بروتين؛ الإنسان (*Homo sapiens*)؛ الحد الأدنى المطلوب لدرجة التفاعل 0.400؛ تتوافق مقاييس الطوبولوجيا الأصلية مع شبكة تفاعلات البروتين-بروتين (PPI) غير الموجهة المكونة من 21 عقدة و116 حافة. |
| SwissTargetPrediction | مجموعة النمذجة الجزيئية، جامعة لوزان / معهد SIB السويسري للمعلوماتية الحيوية | مورد إلكتروني | التنبؤ العكسي بالهدف للمركبات 1–3؛ أنواع تقتصر على Homo sapiens. |
| نموذج الماء TIP3P | مُنفذ في GROMACS | TIP3P | نموذج مياه صريح المذيب ثلاثي المواقع مُستخدم لإذابة معقدات البروتين والربيطة. |
| فيني | BioinfoGP، المركز الوطني للتكنولوجيا الحيوية (Centro Nacional de Biotecnología)íأ (CNB-CSIC) | الإصدار 2.1 | تقاطع قوائم الأهداف المتوقعة للمركب والأهداف المرتبطة بالمرض. |
المراجع
- Sung H, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71:209-49.
- Herbst RS, Morgensztern D, Boshoff C. The biology and management of non-small cell lung cancer. Nature. 2018;553:446-54.
- Kim J, et al. Updates on the treatment of epidermal growth factor receptor-mutant non-small cell lung cancer. Cancer. 2025;131:e35778.
- Lin Y, Wang X, Jin H. EGFR-TKI resistance in NSCLC patients: mechanisms and strategies. Am J Cancer Res. 2014;4:411-35.
- Dasari S, et al. Pharmacological effects of cisplatin combination with natural products in cancer chemotherapy. Int J Mol Sci. 2022;23:1532.
- Ellie S, et al. Chemotherapy drugs cyclophosphamide, cisplatin and doxorubicin induce germ cell loss in an in vitro model of the prepubertal testis. Sci Rep. 2018;8:1773.
- De Bont R, van Larebeke N. Endogenous DNA damage in humans: a review of quantitative data. Mutagenesis. 2004;19:169-85.
- Ciccia A, Elledge SJ. The DNA damage response: making it safe to play with knives. Mol Cell. 2010;40:179-204.
- David SS, Williams SD. Chemistry of glycosylases and endonucleases involved in base-excision repair. Chem Rev. 1998;98:1221-62.
- Robson CN, Hickson ID. Isolation of cDNA clones encoding a human apurinic/apyrimidinic endonuclease that corrects DNA repair and mutagenesis defects in E. coli xth (exonuclease III) mutants. Nucleic Acids Res. 1991;19:5519-23.
- Sczepanski JT, et al. Rapid DNA-protein cross-linking and strand scission by an abasic site in a nucleosome core particle. Proc Natl Acad Sci U S A. 2010;107:22475-80.
- Krokan HE, Bjørås M. Base excision repair. Cold Spring Harb Perspect Biol. 2013;5:a012583.
- Li X, et al. Selective antitumor activity and photocytotoxicity of glutathione-activated abasic site trapping agents. ACS Chem Biol. 2022;17:797-803.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4:682-90.
- Meng XY, et al. Molecular docking: a powerful approach for structure-based drug discovery. Curr Comput Aided Drug Des. 2011;7:146-57.
- Hollingsworth SA, Dror RO. Molecular dynamics simulation for all. Neuron. 2018;99:1129-43.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10:449-61.
- O'Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47:W357-64.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13:2498-504.
- Stelzer G, et al. The GeneCards Suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 2016;54:1.30.1-1.30.33.
- Oliveros JC. Venny: an interactive tool for comparing lists with Venn's diagrams [Internet]. BioinfoGP, CNB-CSIC; 2007-2015.
- Szklarczyk D, et al. The STRING database in 2021: customizable protein-protein networks and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 2021;49:D605-12.
- Chin CH, et al. cytoHubba: identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8:S11.
- Sherman BT, et al. DAVID: a web server for functional enrichment analysis and functional annotation of gene lists (2021 update). Nucleic Acids Res. 2022;50:W216-21.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51:D1373-80.
- Eberhardt J, et al. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61:3891-8.
- Gerek ZN, Ozkan SB. A flexible docking scheme to explore the binding selectivity of PDZ domains. Protein Sci. 2010;19:914-28.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1-2:19-25.
- Best RB, et al. Optimization of the additive CHARMM all-atom protein force field targeting improved sampling of backbone and side-chain dihedral angles. J Chem Theory Comput. 2012;8:3257-73.
- Vassetti D, Pagliai M, Procacci P. Assessment of GAFF2 and OPLS-AA general force fields in combination with the water models TIP3P, SPCE, and OPC3 for the solvation free energy of druglike organic molecules. J Chem Theory Comput. 2019;15:1983-95.
- Jakalian A, Jack DB, Bayly CI. Fast, efficient generation of high-quality atomic charges. AM1-BCC model: II. Parameterization and validation. J Comput Chem. 2002;23:1623-41.
- Sousa da Silva AW, Vranken WF. ACPYPE—AnteChamber PYthon Parser interfacE. BMC Res Notes. 2012;5:367.
- Case DA, et al. AmberTools. J Chem Inf Model. 2023;63:6183-91.
- Valdés-Tresanco MS, et al. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17:6281-91.
- Islam MT, Jang NH, Lee HJ. Natural products as regulators against matrix metalloproteinases for the treatment of cancer. Biomedicines. 2024;12:794.
- Mondal S, et al. Matrix metalloproteinase-9 (MMP-9) and its inhibitors in cancer: a minireview. Eur J Med Chem. 2020;194:112260.
- Rashid ZA, Bardaweel SK. Novel matrix metalloproteinase-9 (MMP-9) inhibitors in cancer treatment. Int J Mol Sci. 2023;24:12133.
- Kessenbrock K, Plaks V, Werb Z. Matrix metalloproteinases: regulators of the tumor microenvironment. Cell. 2010;141:52-67.
- Vandooren J, Van den Steen PE, Opdenakker G. Biochemistry and molecular biology of gelatinase B or matrix metalloproteinase-9 (MMP-9): the next decade. Crit Rev Biochem Mol Biol. 2013;48:222-72.
- Merchant N, et al. Matrix metalloproteinases: their functional role in lung cancer. Carcinogenesis. 2017;38:766-80.
- Chabanon RM, et al. Targeting the DNA damage response in immuno-oncology: developments and opportunities. Nat Rev Cancer. 2021;21:701-17.
- Das S, et al. Surface plasmon resonance as a fascinating approach in target-based drug discovery and development. TrAC Trends Anal Chem. 2024;171:117501.