يصف هذا البروتوكول عزل وتنقية واستزراع خلايا نخاعية/خلايا دبقية صغيرة بشرية عالية النقاء من أنسجة دماغية بعد الوفاة تم الحصول عليها عبر تشريح سريع من أشخاص مصابين وغير مصابين بفيروس نقص المناعة البشرية النوع الأول (HIV-1). ويوفر هذا البروتوكول منصة قوية ex vivo لاستقصاء بيولوجيا الخلايا النخاعية/الخلايا الدبقية الصغيرة، ومستودعات فيروس نقص المناعة البشرية في الدماغ، والالتهاب العصبي، واستراتيجيات علاج فيروس نقص المناعة البشرية.
مقالة منهجية
عزل الخلايا الدبقية الصغيرة في الدماغ لدراسة استمرارية فيروس نقص المناعة البشرية-1
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
لقد قمنا بتطوير وتحسين بروتوكول قوي لعزل واستزراع ودراسة الخلايا النخاعية الأولية في الدماغ البشري (BrMCs) من أنسجة الدماغ بعد الوفاة التي تم الحصول عليها عبر التشريح السريع من أشخاص مصابين أو غير مصابين بفيروس نقص المناعة البشرية-1 (HIV-1)، حيث >تُشكل الخلايا الدبقية الصغيرة في الدماغ (MG) نسبة 97.3% من الخلايا الدبقية أحادية النواة المعزولة من الدماغ (BrMCs). لذا، فإننا نشير إلى هذه الخلايا المعزولة باسم MG أو BrMCs/MG لتمثيل المجموعات الخلوية بشكل أفضل. وتتيح هذه الطريقة إجراء تحليل شامل خارج الجسم الحي دراسة بيولوجيا الخلايا الدبقية الصغيرة، بما في ذلك أدوارها في الحفاظ على مستودعات فيروس نقص المناعة البشرية في الدماغ، والوساطة في الالتهاب العصبي، والمساهمة في إصابة العصبونات، بالإضافة إلى تقييم استراتيجيات علاج فيروس نقص المناعة البشرية.
للحفاظ على حيوية الخلايا وسلامة الحمض النووي الريبوزي (RNA) والبروتينات، تم جمع أنسجة الدماغ في غضون 6 h من الوفاة، وذلك بعد إجراء تشريح سريع لأغراض البحث. تم معالجة مناطق متعددة، بما في ذلك القشور الجبهية والجدارية والقذالية، والحصين، والعقد القاعدية، باستخدام الهضم الإنزيمي والتفكيك الميكانيكي الموجه، يليه الطرد المركزي بتدرج الكثافة لإنتاج معلقات من خلايا مفردة حيوية مع الإزالة الفعالة لبقايا الميالين وتحلل كريات الدم الحمراء. ثم تم تنقية خلايا BrMCs/MG باستخدام نهج عزل مكون من خطوتين، يتكون من استنفاد الخلايا التائية CD3⁺ متبوعاً بالإثراء باستخدام الحبيبات المغناطيسية CD11b⁺ لضمان النقاء والنوعية.
تم استزراع الخلايا النخاعية المنقاة تحت ظروف محددة مدعمة بـ M-CSF للحفاظ على حيويتها وسلامتها الوظيفية خلال الاستزراع المطول ex vivo. وتوفر هذه المنصة المحسنة نظاماً موثوقاً وقابلاً للتوسع لإجراء التحليلات الجزيئية والمناعية والفيروسية اللاحقة لمستودعات HIV المقيمة في الدماغ والآليات ذات الصلة في BrMCs/MG.
المقدمة
تُعد الخلايا النخاعية الدماغية (BrMCs)/الخلايا الدبقية الصغيرة الخلايا المناعية الفطرية الرئيسية في الجهاز العصبي المركزي (CNS)1,2,3. وفي الظروف الصحية، تقوم هذه الخلايا بمراقبة الدماغ باستمرار وتساعد في مهام مثل التشذيب التشابكي، وإزالة الحطام الخلوي، ودعم العصبونات4,5,6. وعند وجود مرض ما، يتم تنشيط الخلايا الدبقية الصغيرة مناعيًا، مما يؤدي إلى حدوث التهاب عصبي يلعب دورًا أساسيًا في التنكس العصبي في اضطرابات الجهاز العصبي المركزي المتنوعة7,8,9. وخلال العدوى بفيروس HIV-1 (HIV)، تكون الخلايا النخاعية الدماغية (BrMCs)/الخلايا الدبقية الصغيرة هي المستودع الرئيسي لفيروس HIV في الدماغ، إلى جانب خلايا T في الجهاز العصبي المركزي وربما الخلايا النجمية؛ ومن المرجح أن تلعب الأخيرة دورًا ثانويًا في مستودعات HIV في الجهاز العصبي المركزي. وتحتوي الخلايا الدبقية الصغيرة على حمض نووي فيروسي HIV مدمج ومصاب بشكل كامن، ولكنها تحافظ على تعبير منخفض المستوى لـ HIV RNA، على الرغم من العلاج الفعال بمضادات الفيروسات القهقرية (ART)10,11,12. وتؤدي العدوى المستمرة بفيروس HIV في الخلايا النخاعية الدماغية (BrMCs)/الخلايا الدبقية الصغيرة إلى التهاب مزمن وترتبط بالاضطراب المعرفي العصبي المرتبط بفيروس HIV (HAND) حتى في ظل استخدام العلاج بمضادات الفيروسات القهقرية الحديث، وهو ما يتضح من خلال الأعراض المعرفية والسلوكية والحركية لدى ما يصل إلى 50% من الأشخاص المصابين بفيروس HIV (PWH)13,14,15,16. وبالتالي، فإن فهم وظيفة الخلايا الدبقية الصغيرة المصابة بفيروس HIV بشكل مستمر هو أحد المفاتيح لتعلم الآلية الجزيئية لعدوى HIV وكمونه، والتواصل المتبادل بين الخلايا الدبقية الصغيرة والخلايا النجمية وخلايا الجهاز العصبي المركزي الأخرى، وإصابة العصبونات، وعملية مرض HAND، وهو أمر بالغ الأهمية لإيجاد أهداف علاجية ضد neuroHIV11,12,17.
ومع ذلك، هناك تحديات تقنية في دراسة الخلايا الدبقية الصغيرة باستخدام أنسجة الدماغ البشري بعد الوفاة. إذ يمكن للمحتوى العالي من الميالين، خاصة في المادة البيضاء، أن يحبس الخلايا ويسد المرشحات، مما يقلل من استعادة الخلايا ما لم يتم إزالة الميالين قبل الاختيار المناعي المغناطيسي18,19. وبعد وفاة الأشخاص الذين يعيشون مع HIV، يمكن أن تتحلل واسمات سطح الخلية، مثل TMEM119 و P2RY12، مما يجعل تحديد الخلايا الدبقية الصغيرة بدقة أكثر صعوبة20,21. بالإضافة إلى ذلك، تحتوي الخلايا النخاعية في الأدمغة المصابة بفيروس HIV على خلايا وحيدةات الدم المحيطية وبالعات مقيمة في الأنسجة تشترك في بعض الواسمات الشائعة مع الخلايا الدبقية الصغيرة؛ لذا، هناك حاجة إلى خطوات إضافية لإثراء المجتمع النقي من BrMCs، وخاصة الخلايا الدبقية الصغيرة22,23.
لا تعمل النهج الحالية لعزل الخلايا الدبقية الصغيرة البشرية بشكل جيد مع الأنسجة التي تم جمعها بعد الوفاة والمصابة بفيروس نقص المناعة البشرية. يوفر الفرز الخلوي المنشط بالفلورة نتائج شاملة، ولكنه يتطلب معدات باهظة الثمن، ويستغرق وقتاً أطول، وينتج حصيلة خلوية منخفضة من كميات صغيرة من أنسجة الدماغ البشري الثمينة24,25. أما تقنية الفرز المناعي فهي محددة، ولكنها لا تستطيع التعامل مع عينات من مناطق دماغية متعددة في وقت واحد وتتطلب فترة تحضين طويلة، وهو أمر غير مناسب للأنسجة التي تم جمعها بعد الوفاة والتي تتطلب معالجة نسيجية سريعة بعد شحنها طوال الليل26,27. كما أن أياً من هذه الطرق لا يسمح باستعادة كل من الخلايا اللمفاوية T والخلايا النخاعية من العينة نفسها، وهو أمر ضروري لإجراء توصيف مناعي كامل لخلايا الجهاز العصبي المركزي المصابة بفيروس نقص المناعة البشرية17,28.
يوفر هذا البروتوكول نهجاً قابلاً للتكرار وموثوقاً وفعالاً لعزل وإثراء الخلايا الدبقية الصغيرة والخلايا المناعية الأخرى في الجهاز العصبي المركزي من أنسجة الدماغ البشري بعد الوفاة والمصابة بفيروس نقص المناعة البشرية (HIV). يمكن للتفكيك الميكانيكي المتحكم به والمدمج مع هضم إنزيمي خفيف (مثل TrypLE Express و DNase I) أن يحافظ إلى حد كبير على المستضدات السطحية ويقلل من تجمع الخلايا29,30. يتم إزالة الميالين من خلال طرد مركزي بتدرج كثافة Percoll، يليه فصل مناعي مغناطيسي للخلايا التائية CD3⁺ والخلايا النخاعية CD11b⁺31,32. والأهم من ذلك، أن استخدام ظروف إنزيمية خفيفة يحافظ على العلامات النخاعية الرئيسية، بما في ذلك CD11b و CD68، بالإضافة إلى المؤشرات الحيوية النوعية للخلايا الدبقية الصغيرة مثل TMEM119 و P2RY12، مما يمكننا من توصيف خلايا الجهاز العصبي المركزي بدقة وإجراء تحليلات لمسارات التأشير اللاحقة33. كما يولد نهج الاختيار المكون من خطوتين جزءاً عالي النقاوة من الخلايا التائية CD3⁺ المناسبة للدراسات الفيروسية والمناعية، وهو أمر ذو صلة خاصة بمرض NeuroHIV، نظراً لدور الخلايا التائية في مخزن الفيروس في الجهاز العصبي المركزي والإصابة العصبية المرتبطة بفيروس نقص المناعة البشرية بعد تسلل الخلايا التائية إلى الدماغ34,35.
بشكل عام، فإن هذا النهج التسلسلي المكون من خطوتين — الاستنفاد الأولي لخلايا CD3⁺ T متبوعاً بإثراء الخلايا النخاعية CD11b⁺ من الجزء السلبي لـ CD3 — يحسن كلاً من نقاء الخلايا وحصيلة خلايا الجهاز العصبي المركزي (CNS)، مع تحقيق أقصى استفادة من عينات الأنسجة الثمينة والمحدودة والقيمة هذه. وتعد الخلايا المعزولة مناسبة لمجموعة واسعة من التطبيقات اللاحقة، بما في ذلك تسلسل RNA للخلايا الكلية والمنفردة، وقياس التدفق الخلوي، والمقايسات الوظيفية، والتحليلات الفيروسية، بما في ذلك تقدير كمية DNA/RNA لفيروس HIV ومقايسات النمو الفيروسي لتحديد مستودعات الفيروس القادرة على التكاثر داخل الخلايا المناعية المقيمة في الجهاز العصبي المركزي17,36,37.
يتوافق هذا البروتوكول مع المختبرات المجهزة لمعالجة أنسجة الدماغ بعد الوفاة في ظل ظروف مستوى السلامة البيولوجية BSL-2+، نظرًا لأن العديد من الأشخاص المتعايشين مع فيروس نقص المناعة البشرية (PWH) يخضعون لعلاج مضاد للفيروسات القهقرية (ART) أو تعرضوا لانقطاع قصير المدى في العلاج في نهاية حياتهم. كما يتطلب فقط منصات الفصل المناعي المغناطيسي وقياس التدفق الخلوي القياسية للتحقق من خصوصية خلايا BrMCs/microglia بعد العزل. وبإجراء تعديلات طفيفة، يمكن تكييفه أيضًا لدراسة أمراض الجهاز العصبي المركزي مثل مرض الزهايمر، والتصلب المتعدد، وكوفيد-19 طويل الأمد، وإصابات الدماغ الرضحية38,39,40. وقد تم تحسين هذا البروتوكول أيضًا لعزل خلايا الدماغ من الرئيسيات غير البشرية (NHPs) المصابة بسلالات SIVmac251 أو SIVmac23912,41، بالإضافة إلى نماذج الفئران المؤنسنة للإصابة بفيروس HIV أو كمون الفيروس، مما يوفر نموذجًا ملائمًا من الناحية الفسيولوجية للإصابة بفيروس HIV في الدماغ. وبخلاف الأدمغة البشرية، فإن هذه النماذج الحيوانية تكون متاحة بشكل أسهل وتوفر موردًا تكميليًا قيمًا للدراسات الميكانيكية والترجمية حول عدوى HIV، وكمون HIV، وما يصاحبها من اعتلالات عصبية مرتبطة بالفيروس (neuroHIV).
البروتوكول
ملاحظة: تعامل مع جميع أنسجة البشر أو الرئيسيات غير البشرية (NHP) وفقاً لشروط المستوى الثاني من السلامة البيولوجية (BSL-2). استخدم معدات الوقاية الشخصية المناسبة، بما في ذلك مئزر المختبر، والقفازات، والقناع، وواقي الوجه، عند التعامل مع محلول Percoll، ومحلول ACK المنظم، وDMSO. تخلص من النفايات الكيميائية والبيولوجية وفقاً للإرشادات المؤسسية. اشطف جميع المعدات التي تستخدم لمرة واحدة والمستخدمة أثناء تفكيك الأنسجة، مثل المشرط والماصات وأطباق بيتري، بمحلول مبيض بتركيز 10% قبل التخلص منها في أكياس النفايات البيولوجية الخطرة. اشطف المعدات القابلة لإعادة الاستخدام، مثل الملاقط والمقصات، بمحلول SDS بتركيز 10% قبل غسلها وتعقيمها بالأتوكلاف.
1. جمع أنسجة الدماغ
- العينات البشرية
ملاحظة: تم الحصول على الأنسجة البشرية المستخدمة في هذه الدراسة بموجب بروتوكولات معتمدة من مجلس المراجعة المؤسسية (IRB) بجامعة كاليفورنيا، سان دييغو (UCSD; IRB No. 160563)12. كان المتبرعون البشريون من الأفراد المتعايشين مع فيروس نقص المناعة البشرية (HIV) الذين يتلقون العلاج بمضادات الفيروسات القهقرية (ART). تم تلخيص الخصائص الرئيسية للمتبرعين هنا، بما في ذلك العمر، والجنس، والفترة الزمنية بعد الوفاة (PMI)، وحالة العلاج بمضادات الفيروسات القهقرية (ART)، وقد وُصفت هذه الخصائص بدقة في المنشور السابق12.- جمع الأنسجة خلال ≤6 h من الوفاة للحفاظ على حيوية الخلايا وسلامة RNA، وإرسالها إلى مختبر المعالجة خلال 24 h.
- عينات الرئيسيات غير البشرية (NHP)
ملاحظة: تم إيواء قرود المكاك الريسوس (Macaca mulatta) في مركز إيموري الوطني لأبحاث الرئيسيات (ENPRC, PROTO201700286) أو مركز كاليفورنيا الوطني لأبحاث الرئيسيات (CNPRC, UCD IACUC #22832). أُجريت إجراءات رعاية الحيوان والتجارب وفقاً للوائح لجان الرعاية والاستخدام المؤسسية للحيوانات (IACUCs) المختصة، وامتثلت للتوجيهات المؤسسية والفيدرالية. جميع مرافق رعاية الحيوان معتمدة من وزارة الزراعة الأمريكية وجمعية تقييم واعتماد رعاية الحيوانات المختبرية الدولية (AAALAC).- جمع الأنسجة فوراً بعد التشريح12.
- جمع الأنسجة
ملاحظة: قم بإجراء جميع عمليات المناولة في أوعية وزن مبردة مسبقاً وموضوعة على الثلج.- جمع 2–20 g من كل منطقة في الدماغ (مثل القشرة الجبهية، والجدارية، والقفوية، والحصين، والعقد القاعدية)، وذلك حسب توفر الأنسجة.
- وضع الأنسجة في وسط DMEM/F12 مبرد بالثلج ومُدعم بالعلاج بمضادات الفيروسات القهقرية (ART): 100 nM Nevirapine، و 200 nM Raltegravir، و 25 nM Darunavir. تُحفظ الأنسجة عند 4 °C.
- شروط النقل
- تخزين العينات في أنابيب محكمة الإغلاق عند 4 °C على الثلج.
- تكليف موظفين معتمدين بنقل الأنابيب وفقاً لـ لوائح الفئة B من UN337312. تُشحن العينات خلال ليلة واحدة على الثلج إلى مختبر المعالجة.
2. تحضير الأنسجة
- انقل النسيج إلى أنابيب سعة 50 mL. اغسل النسيج من 10 إلى 15 مرة عن طريق قلب الأنابيب بلطف مع إضافة 20–40 mL من محلول HBSS البارد مع DNase بتركيز (10 U/mL) حتى يصبح السائل الطافي رائقاً.
ملاحظة: تهدف هذه الخطوة إلى إزالة الدم والحطام والملوثات، لذا تأكد من أن الحجم كافٍ لتحرك قطع النسيج بحرية أثناء الغسيل. - قم بإزالة السحايا والأوعية الدموية الكبيرة والتخلص منها باستخدام ملقط معقم.
- انقل النسيج إلى طبق بتري جديد وسجل وزن النسيج (باستبعاد وزن الوعاء) لكل منطقة من مناطق الدماغ.
- قم بتمزيق النسيج إلى قطع صغيرة بحجم ~1–2 mm باستخدام ملقط معقم في ~10 mL من محلول HBSS + DNase I بتركيز (10 U/mL).
ملاحظة: يمكن إجراء عملية التقطيع في طبق بتري باستخدام المشرط.
3. الهضم الإنزيمي
- قم بتحضير مزيج الهضم عن طريق خلط 10 مل من إنزيم تفكيك الخلايا المؤتلف بتركيز 1x وDNase I (بتركيز نهائي 10 وحدة/مل).
- قم بتسخين الهزاز الدوار مسبقاً إلى 37 °C والإنزيم المأشوب لتفكيك الخلايا مع DNase I (بتركيز نهائي 10 وحدة/مل) في 37 °C حضّانة.
- انقل الأنسجة الموجودة في مزيج الهضم من الخطوة 3.1 إلى دوارق (T150 للأحجام > 50 مل؛ دوارق أصغر إذا <(50 مل) ثم تحضن في هزازات دورانية عند: 37 °C، 150 دورة في الدقيقة، 30 دقيقة.
- قم بالسحق بلطف باستخدام ماصات سعة 10 مل ثم 5 مل عن طريق السحب والدفع المتكرر.
ملاحظة: تجنب السحب والضخ العنيف باستخدام الماصة. - تُحضن العينة لمدة 5 دقائق في درجة حرارة الغرفة للسماح للنسيج بالاستقرار.
- جمع الخلايا
- اجمع السائل الطافي في أنبوب سعة 50 مل؛ وهذا هو المجموعة رقم 1أضف 10% من مصل الجنين البقري (FBS) إلى السائل الطافي الذي تم جمعه لتثبيط نشاط الإنزيم.
- أعد تعليق ما تبقى من النسيج في محلول HBSS + DNase I (بتركيز 10 وحدة/مل) + 10% FBS (بمعدل 10 مل/جم من النسيج). قم بالتجنيس بلطف ثم الرشح عبر مصفاة مسامها 70-100 µm المصافٍ.
ملاحظة: إذا كان الهضم الإنزيمي كافياً، فستمر جميع الأنسجة عبر المصفاة. - يُوضع في جهاز الطرد المركزي عند 500 × جـ، في درجة حرارة الغرفة، لمدة 10 دقائق؛ وهذا هو المجموعة رقم ٢.
ملاحظة: لتحقيق أقصى قدر من الاستعادة، اترك المعلق يترسب وانقل السائل الطافي فقط إلى أنبوب جديد.
- المعالجة النهائية
- قم بطرد العينات المجموعة (C1 و C2) مركزياً عند 500 × ج لمدة 10 دقائق.
- تخلص من الطافات. اجمع رواسب الخلايا من C1 وC2 في أنبوب واحد.
4. إزالة بقايا الميالين (تدرج بيركول)
- قم بتحضير محلول Percoll متساوي التوتر (SIP) عن طريق خلط 9 أجزاء من Percoll مع جزء واحد من محلول HBSS بتركيز 10x. حضّر كمية كافية بحيث يكون هناك ما يقرب من 2.5 مل/جم من النسيج.
- قم بتحضير محلول Percoll العامل بتركيز 35% عن طريق خلط 3.5 مل من SIP مع 5.5 مل من 1x HBSS. حضّر كمية كافية بحيث تكون النسبة ~4.5 مل/جم من النسيج.
- الفصل بالكثافة
- أعد تعليق كتلة الخلايا المترسبة التي تم الحصول عليها من الخطوة 3.7.2 في محلول Percoll بتركيز 35%. استخدم ما يقرب من 4.5 مل من محلول Percoll بتركيز 35% لكل جرام من وزن النسيج الأصلي (أي وزن النسيج الذي تم قياسه قبل عملية التفكيك).
- ملاحظة: أعد تعليق الخلايا باستخدام Percoll بتركيز 35% في أنبوب سعة 50 مل (بحد أقصى 30 مل لكل أنبوب). وفي حال كانت الأنسجة كبيرة، قسّم الخلايا على عدة أنابيب سعة 50 مل.
- قم بتغطية كل أنبوب بعناية باستخدام 10 مل من محلول HBSS بتركيز 1x. تُحضن العينات لمدة 5 دقائق على الثلج أو في درجة حرارة 4 °C.
- يُطرد مركزياً بسرعة 800 × ج، ٤٥ دقيقة، 4 °C (بدون كبح أثناء التباطؤ).
- استعادة الطبقة
- تخلص بعناية من الطافي وطبقة الميالين دون المساس بالطور البيني السفلي.
- اجمع الراسب والطبقة البينية (أسفل طبقة الميالين التي تحتوي على خلايا دماغية مختلطة وكُسر Percoll) في أنبوب مخروطي جديد سعة 50 مل لتجنب انتقال الحطام الخلوي.
- التخفيف والغسل
- أضف محلول HBSS بنسبة 3:1 (على سبيل المثال، 30 مل من HBSS لكل 10 مل من المعلق الذي تم جمعه) لتخفيف Percoll (تخفيف بنحو 3 أضعاف).
- قم بالطرد المركزي عند 1,000 × جـ، ١٠ دقائق عند 4 °C (استخدم الكبح والتسارع الكاملين).
- أزل الطافي تماماً.
- تحلل كريات الدم الحمراء وعد الخلايا
- تُعالج صفيحة الخلايا الناتجة من الخطوة 4.5.3 باستخدام منظم ACK (بكمية 5 مل، ولمدة 10 دقائق، 37 °C).
- قم بتعداد الخلايا الحية باستخدام صبغة Trypan blue.
- ملاحظة: الحصيلة المتوقعة: ~0.1-1 × 10⁶ عدد خلايا الجهاز العصبي المركزي/جرام من النسيج، وذلك اعتماداً على حالة الأنسجة.
- أضف 10 مل من المحلول الملحي المنظم بالفوسفات (PBS) لإبطال مفعول منظم تحلل ACK. استخدم جهاز الطرد المركزي بسرعة 500 × جـ لمدة 5 دقائق.
ملاحظة: توقف اختياري: يمكن استزراع الخلايا طوال الليل قبل عملية الفرز بكثافة تتراوح بين 0.5-1 × 10⁶ خلية/مل من الوسط الغذائي (DMEM/F-12، مكمّل الغلوتامين مع بيروفات الصوديوم (500 مل)، 10% مصل جنين بقر (FBS) مثبط حرارياً، محلول منظم HEPES بتركيز 1x، مضاد حيوي ومضاد للفطريات بتركيز 1x (5.5 مل من محلول مخزون بتركيز 100x)، و10 نانوغرام/مل من عامل تحفيز مستعمرات البلاعم (MCSF) (محلول مخزون بتركيز 1,000x).
بعد الانتهاء من خطوات تفكيك الأنسجة، وتحليل كريات الدم الحمراء، وعدّ الخلايا، وخطوات الزرع لليلة واحدة الاختيارية الموضحة أعلاه، يتم إجراء CD3+ و CD11b+ عُزلت المجموعات الخلوية باستخدام أطقم عزل الخلايا المتوفرة تجاريًا وفقًا لإرشادات الشركة المصنعة. تتوفر معلومات مفصلة بشأن الأطقم والكواشف وإجراء العزل الكامل في الـ جدول المواد، مع تقديم نظرة عامة موجزة عن سير عمل العزل أدناه.
5. عزل خلايا T ذات التعبير عن CD3⁺ (الاصطفاء الإيجابي)
ملاحظة: قم أولاً بعزل خلايا CD3+ من معلق الخلايا المفردة الذي تم تحضيره، وذلك باستخدام طقم اختيار إيجابي مناعي مغناطيسي بصيغة التحرير لـ CD3 (راجع جدول المواد). احتفظ بكل من كسرَي CD3+ و CD3- الناتجين عن هذا القسم. حيث إن كسر CD3- مطلوب للخطوة 6.
- تحضير محلول التحرير.
- قم بتحضير محلول تحرير بتركيز 1x عن طريق تخفيف محلول التحرير المركز بتركيز 40x في محلول فصل الخلايا في يوم الاستخدام، واحفظه في درجة حرارة 4–6 °C أو على الثلج.
ملاحظة: قم بتحضير 2.5 mL من محلول التحرير 1x لكل عينة سيتم معالجتها.
- قم بتحضير محلول تحرير بتركيز 1x عن طريق تخفيف محلول التحرير المركز بتركيز 40x في محلول فصل الخلايا في يوم الاستخدام، واحفظه في درجة حرارة 4–6 °C أو على الثلج.
- تحضير عينة الخلايا ووسمها بـ "كوكتيل" الاختيار.
- أعد تعليق كتلة الخلايا الناتجة من الخطوة 4.6.3 بتركيز 1 × 10⁸ خلايا/mL في محلول فصل الخلايا داخل أنبوب بوليسترين بقاع مستدير سعة 5 mL.
- أضف كوكتيل اختيار CD3 إلى العينة بمعدل 100 µL لكل mL من العينة. اخلط العينة بلطف واحضنها لمدة 3 min في درجة حرارة الغرفة.
- وسم العينة بالجسيمات المغناطيسية.
- استخدم جهاز رجّ (Vortex) لخلط الجسيمات المغناطيسية لمدة 30 s مباشرة قبل الاستخدام. أضف الجسيمات المغناطيسية إلى العينة بمعدل 100 µL لكل mL لكل عينة. اخلط العينة بلطف واحضنها لمدة 3 min في درجة حرارة الغرفة.
- أكمل حجم العينة ليصل إلى حجم إجمالي قدره 2 mL باستخدام محلول فصل الخلايا، واخلطها عن طريق سحب المعلق ودفعه بلطف باستخدام الماصة لمرتين أو ثلاث مرات.
- عزل تفاعل CD3+ عن طريق الفصل المغناطيسي.
- ضع أنبوب العينة غير مغطى في جهاز فصل الخلايا المغناطيسي واحضنه لمدة 5 min في درجة حرارة الغرفة.
- ملاحظة: تشكل الخلايا المرتبطة بالجسيمات المغناطيسية جزء CD3+ وتظل ملتصقة بجدار الأنبوب داخل المجال المغناطيسي؛ بينما يشكل الراشح غير المرتبط جزء CD3-.
- دون إزالة الأنبوب من الفاصل المغناطيسي، اسحب الراشح باستخدام الماصة وانقله إلى أنبوب مخروطي نظيف وموسوم سعة 15 mL مخصص لجزء CD3-.
- أزل الأنبوب من الفاصل المغناطيسي وأعد تعليق الخلايا المحتجزة بلطف في 2 mL من محلول فصل الخلايا.
- كرر الخطوات من 5.4.1 إلى 5.4.3 لإجراء إجمالي ثلاث عمليات فصل مغناطيسي مدة كل منها 5 min، مع تجميع كل الرواشح في أنبوب جزء CD3- نفسه.
- تحرير جزء CD3+ من الجسيمات المغناطيسية.
- أضف 2.5 mL من محلول التحرير 1x (الذي تم تحضيره في الخطوة 5.1.2) إلى الخلايا المحتجزة، واخلطها عن طريق سحب المعلق ودفعه بلطف باستخدام الماصة من مرتين إلى ثلاث مرات. احضن المعلق لمدة 3 min في درجة حرارة الغرفة.
- ضع الأنبوب غير مغطى في جهاز فصل الخلايا المغناطيسي واحضنه لمدة 5 min في درجة حرارة الغرفة.
- دون إزالة الأنبوب من الفاصل المغناطيسي، اسحب الراشح باستخدام الماصة وانقله إلى أنبوب مخروطي نظيف وموسوم سعة 15 mL مخصص لجزء CD3+.
ملاحظة: يعمل محلول التحرير على فصل الجسيمات المغناطيسية عن الخلايا الموّسمة: ويكون الراشح الناتج هو جزء CD3+ المنقى، بينما تظل الجسيمات المغناطيسية المتبقية مرتبطة بجدار الأنبوب في المجال المغناطيسي ويتم التخلص منها.
- عد الخلايا والحفظ بالتجميد
- قم بعد الخلايا وتخزين حصة CD3+ عن طريق التجميد السريع للحصص في درجة حرارة -80 °C بعد حفظ الخلايا المتبقية بالتجميد في خليط تجميد (90% FBS + 10% DMSO) لمدة 24 h في وسط تجميد قائم على الإيزوبروبانول، ثم انقل العينة إلى النيتروجين السائل.
6. عزل الخلايا النخاعية CD11b⁺ (من جزء CD3⁻)
ملاحظة: تم تمرير جزء CD3- المستبقى من الخطوة 5.4.4 عبر خطوة اختيار إيجابية مناعية مغناطيسية ثانية لعزل الخلايا النخاعية CD11b+ باستخدام حبيبات مغناطيسية دقيقة مضادة لـ CD11b وفاصل مغناطيسي بتصميم عمودي (راجع جدول المواد).
- قم بتحضير محلول الفصل المؤقت وتحديد عدد الخلايا.
- قم بتحضير محلول الفصل القائم على BSA بتركيز 1x عن طريق تخفيف التركيز 20x في محلول شطف متساوي التوتر، واحفظ المحلول المحضر بارداً (4-8 °C) حتى يحين وقت الاستخدام.
- حدد العدد الإجمالي للخلايا في جزء CD3 باستخدام مقياس كرات الدم (hemocytometer) أو عداد خلايا آلي.
- وسم الخلايا باستخدام حبيبات مغناطيسية دقيقة مضادة لـ CD11b.
- قم بطرد معلق الخلايا مركزياً عند 300 × ج لمدة 10 دقائق، ثم يتم سحب السائل الطافي بالكامل.
- أعد تعليق كتلة الخلايا في 80 µL من محلول منظم للفصل القائم على BSA بتركيز 1x لكل 1 × 10⁷ إجمالي الخلايا.
- أضف 20 µL من الخرزات المغناطيسية الدقيقة المضادة لـ CD11b لكل 1 × 10⁷ إجمالي الخلايا، وامزج جيداً، ثم حضّن لمدة 15 دقيقة عند 4-8 °C.
- ملاحظة: قد تتطلب الحضانة على ثلج رطب بدلاً من الثلاجة وقتاً أطول للحضانة. كما أن الحضانة في درجات حرارة أعلى أو لفترة أطول من الوقت الموصى به قد تزيد من خطر وسم الخلايا غير النوعي.
- اغسل الخلايا المحددة بإضافة 1 مل من محلول الفصل بتركيز 1x لكل 1 × 10⁷ الخلايا، تُطرد مركزياً عند 300 × ج لمدة 10 دقائق، ثم يتم سحب السائل الطافي بالكامل.
- أعد تعليق ما يصل إلى 1 × 10⁸ إجمالي الخلايا في 500 µL من محلول الفصل المنظم.
- أجرِ عملية الفصل المغناطيسي القائمة على العمود.
- ضع عمود الفصل المغناطيسي في الفاصل المغناطيسي وقم بموازنته عن طريق الشطف بـ 500 µL من محلول الفصل بتركيز 1x للعمود ذو الحجم الصغير، أو 1 مل من محلول الفصل بتركيز 1x للعمود ذو الحجم الكبير؛ ثم يتم التخلص من سائل الشطف الناتج.
ملاحظة: استخدم عموداً ذا سعة صغيرة عندما تحتوي العينة على عدد قليل من الخلايا الإجمالية. واستخدم عموداً ذا سعة كبيرة للعينات التي تحتوي على أعداد كبيرة من الخلايا الإجمالية، مثل التحضيرات المناعية المشتقة من الطحال أو التحضيرات المناعية المشتركة. - ضع أنبوب بوليسترين نظيفاً مستدير القاع بسعة 5 مل أسفل العمود المتوازن، ثم طبق الـ 500 µL معلق خلوي مُعلّم بحجم 0.5 مل (عمود صغير الحجم) أو 1 مل (عمود كبير الحجم) إلى أعلى العمود.
- بعد دخول العينة بالكامل إلى العمود، اغسل العمود ثلاث مرات مع إضافة 500 µL من محلول الفصل بتركيز 1x لكل غسلة للأعمدة صغيرة الحجم، أو 1 مل لكل غسلة للأعمدة كبيرة الحجم. لا تُضف كل غسلة لاحقة إلا بعد إفراغ خزان العمود تماماً.
ملاحظة: يمثل التدفق المشترك الذي تم جمعه في الخطوتين 6.3.2 و6.3.3 العينة غير الموصومة من CD11b- جزء. - أخرج العمود من الفاصل المغناطيسي وضعه في أنبوب بوليسترين نظيف ومعلم سعة 5 مل مخصص لـ CD11b.+ جزء.
- انقل بواسطة الماصة 1 مل (في حالة العمود ذي الحجم الصغير) أو 2 مل (في حالة العمود ذي الحجم الكبير) من محلول الفصل المنظم بتركيز 1x فوق الجزء العلوي من العمود، ثم قم فوراً بدفع الخلايا الموسومة إلى أنبوب التجميع عن طريق الضغط بقوة على المكبس المرفق مع العمود.
- ضع عمود الفصل المغناطيسي في الفاصل المغناطيسي وقم بموازنته عن طريق الشطف بـ 500 µL من محلول الفصل بتركيز 1x للعمود ذو الحجم الصغير، أو 1 مل من محلول الفصل بتركيز 1x للعمود ذو الحجم الكبير؛ ثم يتم التخلص من سائل الشطف الناتج.
- التقدير الكمي والمعالجة اللاحقة لـ CD11b+ أجزاء
- قم بعدّ الخلايا من كلا الجزئين (CD11b+ وCD11b-) وتخزين CD11b- تجزئة العينة عن طريق التجميد السريع عند -80 °C بعد تجميد الخلايا المتبقية في خليط تجميد (90% FBS + 10% DMSO) لمدة 24 ساعة في وسط تجميد قائم على الكحول الإيزوبروبيلي، ثم نقل العينة إلى النيتروجين السائل.
- استخدم CD11b+ خلايا للتجارب اللاحقة.
النتائج
يتيح سير العمل المُحسَّن والموصوف في هذا البروتوكول عزلًا قابلًا للتكرار لخلايا T الحية وعالية الإثراء، والخلايا المناعية المقيمة في الدماغ/الخلايا الدبقية الصغيرة (BrMCs/microglia) من أنسجة الدماغ البشري المصابة بفيروس نقص المناعة البشرية (HIV) بعد الوفاة. ويتم تأكيد التنفيذ الناجح للبروتوكول من خلال سلسلة من نقاط تدقيق الجودة، بما في ذلك تقييم حيوية الخلايا، وقياس الكمية المستخلصة، والتوصيف المناعي المظهري في مراحل رئيسية. وفيما يلي وصف للنتائج النموذجية لتجربة ناجحة.
تفكيك الأنسجة واستعادة الخلايا
كما هو موضح في الشكل 1A، بعد التفكيك الميكانيكي والطهور باستخدام تدرج الكثافة، يجب أن تنتج العينة المعالجة جيداً راسباً واضحاً بصرياً مع حد أدنى من بقايا الميالين المتبقية بعد طرد مركزي بـ Percoll. في التجارب التمثيلية التي استخدمت أنسجة دماغية مأخوذة من تشريح سريع لأشخاص متعايشين مع HIV (PWH)، تتراوح حصيلة الخلايا الكلية قبل الاختيار المناعي المغناطيسي عادةً بين 8.0 × 10⁴ و 1.0 × 10⁶ خلية لكل جرام من أنسجة الدماغ، وهي أقل بكثير من الحصيلة المستمدة من أنسجة الطحال (~5 × 10⁷ خلية/ج) (الجدول 1)، مما يعكس الاختلافات البيولوجية الجوهرية بين هذه الأنسجة.
غالباً ما ترتبط العوائد المنخفضة أو تراجع الحيوية بطول الفترات الزمنية بعد الوفاة (>24 h)، أو ظروف تخزين الأنسجة غير المثالية، أو القوة الميكانيكية المفرطة أثناء التجانس. وفي مثل هذه الحالات، تظهر طبقة الميالين بعد طرد مركزي Percoll أكثر سمكاً وأكثر انتشاراً، وتكون الطبقة البينية التي تحتوي على خلايا الجهاز العصبي المركزي أقل تحديداً. وقد يؤدي الإزالة غير الكاملة لطبقة الميالين (الخطوة 4.4 من البروتوكول) إلى التلوث ببقايا الميالين، والتي قد يتم تشخيصها خطأً كخلايا ميتة أثناء عد استبعاد trypan blue. ويمكن لهذا التلوث أيضاً أن يعيق وسم الأجسام المضادة اللاحق، مما يؤثر سلباً على كفاءة الفصل المغناطيسي. وإذا اشتبه في انتقال الميالين، يُوصى بإجراء خطوة إضافية من الطرد المركزي بتدرج Percoll قبل الاختيار المناعي المغناطيسي.
كسر خلايا T من نوع CD3+
CD3⁺ تخدم خطوة الانتقاء الإيجابي للخلايا التائية غرضاً مزدوجاً: إثراء جزء الخلايا التائية لإجراء تحليلات متوازية لخلايا الجهاز العصبي المركزي، وفي الوقت ذاته استنفاد الخلايا اللمفاوية التائية المرتشحة من الجزء المثرى بالخلايا النخاعية لاستبعاد أي تلوث محتمل بالخلايا التائية في الخلايا النخاعية المعزولة. وفي تجارب ممثلة، فإن CD3⁺ شكل هذا الجزء حوالي 2-8% من إجمالي الخلايا المعزولة (حوالي 1 × 10⁴ خلية/جم من النسيج) (الجدول 1)، وهو ما يتوافق مع التقارير السابقة التي تشير إلى محدودية وانخفاض مستويات ارتشاح الخلايا التائية في أنسجة الجهاز العصبي المركزي المصابة بفيروس نقص المناعة البشرية.
CD11b⁺ إثراء وتوصيف BrMC و خارج الجسم الحي زراعة نسيجية
بعد استنفاد الخلايا CD3⁺، خضع الجزء CD3⁻ لعملية اختيار الخلايا CD11b⁺ باستخدام الخرزات المغناطيسية الدقيقة. وكما ورد سابقاً(12)، مكننا هذا الإجراء من إثراء الخلايا BrMCs من النوع CD11b⁺ لتصل نسبتها إلى 95.2%، مقارنة بـ 28.4% في الجزء ما قبل الاختيار. وقد أظهر تحليل RT-qPCR عالي الحساسية لعلامة الخلايا التائية CD3E (القادر على اكتشاف خلية تائية واحدة من بين مليون خلية BrMCs) عدم وجود خلايا تائية يمكن اكتشافها في خلايا BrMCs/microglia المعزولة(12)، مما يؤكد نقاءها العالي وينفي وجود أي تلوث بالخلايا التائية.
CD11b منقى⁺ ثم زُرعت خلايا BrMCs في وسط استنبات الخلايا الدبقية الصغيرة لمدة تصل إلى أسبوعين للسماح بتعافي الخلايا والتصاقها لبدء نموها. وكما هو موضح في الشكل 1B، وشكلت خلايا BrMCs البشرية المعزولة طبقة أحادية في وقت مبكر من اليوم الخامس بعد العزل، وأظهرت مورفولوجيا ثنائية القطب. هذه الخلايا الآن جاهزة لـ خارج الجسم الحي القياسات، والتوصيف، والمقايسات الوظيفية اللاحقة. تحليل نموذجي للنقاء باستخدام قياس التدفق الخلوي لـ CD11b⁺ يظهر الجزء الذي تم عزله من دماغ الرئيسيات غير البشرية (NHP) في الشكل 2أ، مما يثبت أن 97.3% من الخلايا عبرت بشكل مشترك عن CD11b وTMEM119. وقد وُصِفت درجة نقاء تحضيرات خلايا الدماغ الدقيقة (BrMC) البشرية وتلك الخاصة بالرئيسيات غير البشرية (NHP) الأخرى سابقاً.12وفي تلك التحليلات، فإن CD11b⁺ تم إثراء الكسر من 28.4% إلى 95.5%، مع TMEM119⁺ خلايا تشكل ما يصل إلى 95.9% من المجموعة المعزولة من العينات البشرية. ونشير إلى هذه الخلايا باسم الخلايا الدبقية الصغيرة (microglia)، على الرغم من أن نسبة صغيرة منها قد تمثل مجموعات أخرى من الخلايا النخاعية المقيمة في الدماغ.
يمكن أيضاً تطبيق إجراء مماثل لعزل خلايا T ذات الواسم CD3⁺ وخلايا النخاع ذات الواسم CD11b⁺ (SMCs) من الطحال (الجدول 1). وأظهر تقييم النقاء وجود ~98.9% من خلايا CD3+ و 99.3% من خلايا CD11b+ (الشكل 2B,C). ويمكن الحفاظ على هذه المجموعات من الخلايا الحية في المزرعة (الشكل 2E,F)، مما يتيح إجراء تحليلات مقارنة مزدوجة مع خلايا الجهاز العصبي المركزي المعزولة (الشكل 2D).
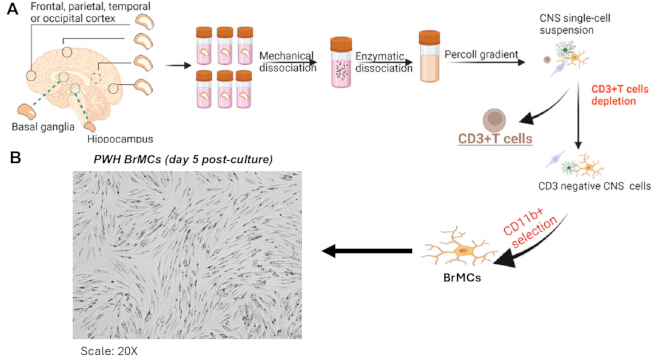
الشكل 1. إجراء عزل تتابعي مكون من خطوتين لتنقية BrMCs. (أ) مخطط لإجراء عزل خلايا CNS المكون من خطوتين لتنقية CD11b⁺ BrMCs. (ب) يظهر المورفولوجيا الخاصة بـ BrMCs (تكبير 100x) بعد 5 أيام في المزرعة نجاح التصاق MG بالطبق. الاختصارات: BrMCs = خلايا النخاع الدماغية؛ CNS = الجهاز العصبي المركزي؛ MG = الخلايا الدبقية الصغيرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
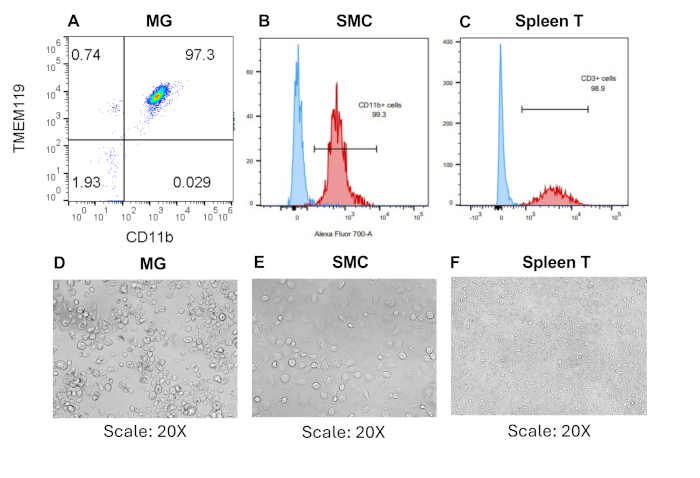
الشكل 2. العزل الناجح للخلايا التائية والخلايا النخاعية من الطحال. (A-C) تحليل قياس التدفق الخلوي لأجزاء CD3⁺ وCD11b⁺ باستخدام الأجسام المضادة المحددة. (D-F) تُظهر الصور التمثيلية (في الأسفل) الخلايا الدبقية الصغيرة، والخلايا التائية CD3⁺، والخلايا النخاعية الطحالية بعد 7 أيام من الزرع عقب العزل من الدماغ والطحال (المقياس: 20x). الاختصارات: SMCs = الخلايا النخاعية الطحالية؛ MG = الخلايا الدبقية الصغيرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| المنطقة | وزن النسيج (جم) | مرحلة ما قبل العزل | CD3+ الخلايا التائية | CD11b+ خلايا العضلات الملساء الشعيرية/خلايا العضلات الملساء | |||
| الأشخاص المتعايشون مع فيروس نقص المناعة البشرية | خلايا حية | خلية/جم من النسيج | خلايا حية | خلية/جم من النسيج | خلايا حية | خلية/جم من النسيج | |
| FCP | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.33E+04 | 2.82E+06 | 1.55E+05 |
| تفاعل البوليميراز المتسلسل في الوقت الحقيقي (PCT) | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| OCC | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| معدل تكرار التكرارات (CRB) | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.00E+04 | 6.00E+04 | ||
| مستوى ضغط الصوت (SPL) | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
الجدول 1: إنتاجية كل نوع من الخلايا بعد عملية عزل خلايا الجهاز العصبي المركزي المكونة من خطوتين.
المناقشة
لجمع بيانات قابلة للتكرار باستخدام هذا البروتوكول، من المهم اتباع كل خطوة بدقة. فقد يؤدي إغفال أي جزء أو الاستعجال في تنفيذه إلى خفض إنتاجية الخلايا وحيويتها ونقائها. إن العامل الأكثر أهمية قبل التحليل هو مدى سرعة معالجة الأنسجة بعد الوفاة42. يجب التعامل مع أنسجة الدماغ البشري في أسرع وقت ممكن، ويفضل أن يكون ذلك خلال 6–12 h. إذ يؤدي الانتظار لفترة أطول إلى تحلل مستضدات سطح الخلايا الدبقية الصغيرة مثل TMEM119 و P2RY12 ويقلل من حيوية الخلايا20. ولتجنب ذلك، من الضروري التأكد من نقل الأنسجة على الفور وتخزينها مباشرة عند 4 °C في محلول HBSS مع DNase I.
يجب ضبط التفكيك الميكانيكي بعناية43. إذ يؤدي التجانس المفرط إلى تكسير الخلايا وتحرير الحمض النووي DNA، مما يسبب التكتل ويقلل من كل من الإنتاجية وكفاءة العمود44. وإذا لم يتم تجانس الأنسجة بشكل كافٍ، ستظل الخلايا الحية محبوسة داخل شظايا الأنسجة. ويساعد إضافة DNase I إلى وسط التفكيك في منع التكتل45. وعادة ما تنجح عملية استخدام ثلاث إلى أربع دورات طحن مع إجراء عمليات شطف بينها. وبالنسبة لطرد مركزي تدرج كثافة Percoll، من المهم اتباع إعدادات جهاز الطرد المركزي بدقة وعدم استخدام المكابح، لأن ذلك سيؤدي إلى خلط الطبقات وإفساد فصل الخلايا45. وعند إضافة HBSS إلى معلق Percoll، يجب صب HBSS ببطء على طول جدار الأنبوب للحفاظ على انفصال الطبقات. وإذا كان الباحثون مبتدئين في هذه العملية، فينصح بالتدرب باستخدام محاليل ملونة قبل استخدام أنسجة قيمة. وخلال عملية فصل العمود المغناطيسي لـ CD11b+، يجب حفظ الخلايا وجميع المحاليل المنظمة عند 4–8 °C. وإذا ارتفعت درجة الحرارة عن ذلك أثناء تحضين الخرزات الدقيقة، فقد يؤدي ذلك إلى وسم غير نوعي، وتغطية الأجسام المضادة (antibody capping)، والتقاط الخرزات، وكل ذلك سيقلل بشكل كبير من النقاء وكفاءة الاختيار33.
يمكن تعديل هذا البروتوكول ليتناسب مع أنواع مختلفة من الأنسجة أو تجهيزات المختبر. إذا كانت الأنسجة تحتوي على العديد من خلايا الدم الحمراء، كما هو الحال عند عدم اكتمال تروية القلب، يمكن إضافة خطوة تحلل باستخدام محلول ACK قبل عملية الطرد المركزي المتدرج بـ Percoll لإزالتها وتحسين عملية الفصل46. يجب ألا يتم التحضين بمحلول ACK لفترات طويلة، لأن ذلك قد يؤثر سلبًا على حيوية الكريات البيضاء47. وفي حال ظلت الإنتاجية منخفضة، يجب فحص الحطام المتبقي على المصفاة تحت مجهر تشريحي. إذا كانت هناك كمية كبيرة من الأنسجة الحيوية، يمكن زيادة عدد دورات الطحن، أو تقطيع قطع الأنسجة إلى أحجام أصغر من 0.5 g لكل مصفاة. وعند الاستعادة من تدرج Percoll، من المثالي ترك كمية صغيرة من Percoll فوق الراسب بدلاً من المخاطرة بفقدان الطور البيني. وإذا حدث انسداد في العمود أثناء عملية الفصل بتقنية MACS، فإن ذلك يشير عادةً إلى تحميل عدد كبير جدًا من الخلايا أو بقاء الحطام في المعلق.
بينما صُمم هذا البروتوكول لأنسجة الدماغ البشري المصابة بفيروس نقص المناعة البشرية (HIV)، إلا أن هناك بعض القيود الهامة التي يجب مراعاتها عند تفسير النتائج. فالتفكيك الميكانيكي يؤدي دائمًا إلى إجهاد خلوي، وهو ما قد يغير مؤقتًا من التعبير الجيني للخلايا الدبقية الصغيرة (microglia) وينشط المسارات الالتهابية33,48. وثمة قيد آخر يتمثل في استخدام CD11b كعلامة اختيار أساسية؛ حيث يوجد CD11b في العديد من الخلايا النخاعية في الجهاز العصبي المركزي، وليس فقط في الخلايا الدبقية الصغيرة، كما يتواجد أيضًا في الخلايا الوحيدة والبلاعم المرتشحة، والتي تكون أكثر شيوعًا في الأنسجة المصابة بفيروس HIV بسبب الالتهاب العصبي49. وللتمييز بين الخلايا الدبقية الصغيرة المقيمة والخلايا المرتشحة، يلزم إجراء تحليل إضافي باستخدام علامات محددة للخلايا الدبقية الصغيرة مثل TMEM119 وP2RY12 وSALL120,50. أما القيد الثالث فهو مدى توفر الأنسجة والاختلافات بين المانحين؛ إذ لا يمكن استبدال عينات الدماغ البشري بعد الوفاة، مما يجعل تحسين البروتوكول باستخدام مكررات تقنية من المانح نفسه تحديًا كبيرًا. كما توجد اختلافات بين الأنسجة من حيث الحصيلة، والحيوية، وتنشيط الخلايا الدبقية الصغيرة، خاصة لدى الأشخاص المتعايشين مع فيروس نقص المناعة البشرية (PWH)، حيث تتباين الحالة المعرفية العصبية، وتاريخ العلاج بمضادات الفيروسات القهقرية (ART)، والمشكلات الصحية الأخرى بشكل كبير. ويجب تسجيل هذه الاختلافات والتحكم فيها بعناية في التجارب.
مقارنةً بالطرق الأخرى، يحقق الفصل القائم على تقنية FACS باستخدام أجسام مضادة ضد CD11b أو CD45 أو TMEM119 أو P2RY12 درجة نقاء عالية، ولكنه يتطلب معدات باهظة الثمن، ويستهلك وقتاً طويلاً، ويزيد من الإجهاد الخلوي33,51. كما يؤدي أيضاً إلى استرداد عدد أقل من الخلايا مقارنة بالطرق القائمة على الخرزات المغناطيسية52. أما طريقة Immunopanning فهي محددة للغاية ولكنها تستهلك وقتاً طويلاً أيضاً، وتتطلب تحضيراً خاصاً للركيزة، ولا تتناسب جيداً مع معالجة الأنسجة المستمدة من مناطق متعددة53. ويمكن لأطقم التفكيك الإنزيمي التجارية أن تحسن إنتاجية الخلايا المفردة وتقلل من الإجهاد الميكانيكي، إلا أنها أكثر تكلفة وقد تغير علامات سطح الخلية عبر نشاط البروتياز، مما يقلل من كفاءة الوسم في خطوات القياس التدفقي أو الفصل المناعي المغناطيسي اللاحقة54,55. وبناءً على ذلك، يتضمن هذا البروتوكول هضماً إنزيمياً خفيفاً خلال خطوة التفكيك الرئيسية للحفاظ على المستضدات السطحية، وهو أمر مهم بشكل خاص للعلامات الحساسة مثل CD11b و CD68 و TMEM119. يوفر نهج الاستنفاد والإثراء المناعي المغناطيسي المتدرج المستخدم هنا، والذي يبدأ باستنفاد خلايا T من نوع CD3+ يليه اختيار إيجابي لخلايا CD11b+، ميزة فعلية في سير العمل مقارنة بالبروتوكولات أحادية الخطوة؛ إذ يتيح استرداد خلايا T لإجراء دراسات مناعية موازية مع تعظيم نقاء الجزء النقوي. وهذا الاسترداد المزدوج مفيد بشكل خاص في أبحاث خزان HIV، حيث تكون كل من خلايا T والخلايا النقوية في الجهاز العصبي المركزي (CNS) مهمة للدراسة.
الـ CD11b المعزول+ يمكن استخدام الخلايا في مجموعة متنوعة من تطبيقات الأبحاث. ولدراسة مستودعات الفيروسات، يعد هذا الجزء مناسباً لقياس مستضد p24 لفيروس نقص المناعة البشرية (HIV)، وعدد نسخ الحمض النووي الريبوزي منقوص الأكسجين (DNA) أو الحمض النووي الريبوزي (RNA) لفيروس نقص المناعة البشرية بواسطة تفاعل البوليميراز المتسلسل الرقمي القطيري (droplet digital PCR)، و خارج الجسم الحي مقايسات النمو الفيروسي56,57تتطلب كل هذه العمليات وجود خلايا نخاعية حيوية ومُغناة، وهي مهمة لفهم خزان الجهاز العصبي المركزي الذي يستمر على الرغم من العلاج بمضادات الفيروسات القهقرية (ART).58بالنسبة للدراسات النسخية، فإن الخلايا التي يتم تحضيرها وفقاً لهذا البروتوكول مناسبة لكل من تسلسل الحمض النووي الريبوزي (RNA) الشامل وتسلسل الخلية الواحدة.59,60يتيح ذلك للباحثين دراسة تنشيط الخلايا الدبقية الصغيرة، وبصمات الخلايا الدبقية الصغيرة المرتبطة بالمرض، واستجابات الخلايا الدبقية الصغيرة للعدوى بفيروس نقص المناعة البشرية على مستوى الخلية الواحدة.61ويمكن تطبيق سير العمل هذا على أمراض عصبية أخرى، بما في ذلك مرض ألزهايمر، والتصلب المتعدد، وكوفيد-19 طويل الأمد، وإصابات الدماغ الرضحية، والتي تتطلب أيضًا تحليل الخلايا الدبقية الصغيرة في الأنسجة بعد الوفاة، وذلك بإجراء تغييرات طفيفة، مثل استخدام أطقم اختيار مختلفة وضبط أحجام التدرج.49,62.
باختصار، يوفر هذا البروتوكول طريقة موثوقة وقابلة للتطوير والمرونة والتكرار لعزل الخلايا النخاعية/الخلايا الدبقية الصغيرة من أنسجة الدماغ البشرية والحيوانية. ونظراً لأن هذه الطريقة تتوافق مع العديد من المنصات التحليلية اللاحقة وتسمح باستعادة أنواع متعددة من الخلايا المناعية من عينة نسيجية واحدة، فإنها تعد أداة قيمة للباحثين في مجالات المناعة العصبية، وعلم الفيروسات، وعلم الأمراض العصبية.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
شكر وتقدير
نتوجه بالشكر إلى الدكتورة سارة جيانيلا من مجموعة "Last Gift" في جامعة كاليفورنيا سان دييغو لجمعها للأنسجة البشرية. كما نشكر الدكتورة آن شحرودي في مركز إيموري الوطني لأبحاث الرئيسيات، والدكتور أفام أوكوي في مركز أوريغون الصحي &؛ وجامعة العلوم، والدكتور Satya Dandekar في جامعة كاليفورنيا، ديفيس، لتوفير أنسجة قرود الريسوس. تم دعم هذا العمل من خلال المنح R21MH128034 وR01MH136852 وR21AI167709 وR01MH139446 وR01AI186609. لم يكن للممولين أي دور في تصميم الدراسة، أو جمع البيانات وتحليلها، أو قرار النشر، أو إعداد المخطوطة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| محاقن سعة 10 مل | VWR | رقم الكتالوج 76837-040 | |
| ماصات سيرولوجية سعة 25 مل | VWR | رقم الكتالوج 76201-710 | |
| محلول ACK لإحلال الخلايا | Thermo Fisher Scientific | رقم الكتالوج A1049201 | |
| مضاد حيوي ومضاد للفطريات (100x) | Thermo Fisher Scientific | رقم الكتالوج 15240112 | |
| محلول شطف autoMACS | Miltenyi Biotec | رقم الكتالوج 130-091-222 | |
| كابينة السلامة الحيوية (BSL-2) | |||
| خرزات CD11b الدقيقة، للبشر والفئران – مجفف بالتجميد | Miltenyi Biotec | رقم الكتالوج 130-097-142 | |
| خرزات CD11b الدقيقة، لرئيسيات غير بشرية | Miltenyi Biotec | رقم الكتالوج 130-091-100 | |
| طقم خرزات CD3 الدقيقة، للرئيسيات غير البشرية | Miltenyi Biotec | رقم الكتالوج 130-092-012 | |
| شرائح عد الخلايا | Thermo Fisher Countess | رقم الكتالوج# C10312 | بديل VWR، رقم الكتالوج 10228-0050 |
| مبيض Clorox المبيد للجراثيم | Essendant | رقم الكتالوج 50371500 | |
| أطباق زراعة غير معالجة من Corning | Thermo Fisher Scientific | رقم الكتالوج 08-772-32 | |
| عامل تحفيز مستعمرات الخلايا الوحيدة (M-CSF) في قرد السينومولجوس | Kingfisher Biotech | رقم الكتالوج RP1612Y-100 | |
| محاقن تستخدم لمرة واحدة ذات رؤوس من نوع Luer-Lok | بي دي (BD) | رقم الكتالوج 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | رقم الكتالوج 11320082 | |
| DNase I، مأشوب، خالٍ من RNase | Roche | رقم الكتالوج 4716728001 | |
| منظم EasySep | STEMCELL Technologies | رقم الكتالوج # 20144 | |
| طقم EasySep FITC للاصطفاء الإيجابي الثاني | STEMCELL Technologies | رقم الكتالوج 17682 | |
| طقم EasySep Release للاختيار الإيجابي لخلايا CD3 البشرية | STEMCELL Technologies | رقم الكتالوج 17751 | |
| مرشحات الخلايا من Falcon، 70 µm و 100 µm | Corning | رقم الكتالوج 21008-950 | |
| مصل جنين البقر (FBS) | VWR | رقم الكتالوج #97068-091 | |
| ملقط منحني دقيق | VWR | رقم الكتالوج 82027-410 | |
| جنتاميسين | Thermo Fisher Scientific | رقم الكتالوج 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | رقم الكتالوج 11875-119 | |
| محلول HBSS، بتركيز 1x خالي من الكالسيوم والمغنيسيوم والفينول الأحمر | Thermo Fisher Scientific | رقم الكتالوج 14175103 | |
| محلول HBSS، تركيز 10x، يحتوي على الكالسيوم والمغنيسيوم والفينول الأحمر | Thermo Fisher Scientific | رقم الكتالوج 14060040 | |
| مقياس خلايا الدم (Hemocytometer) أو عداد خلايا آلي | |||
| عامل تحفيز مستعمرات الخلايا البلعمية البشري (Human M-CSF) | PeproTech | رقم الكتالوج# 300-25 | رقم كتالوج بديل 78057# |
| محلول شطف/تخفيف متساوي التوتر للفصل المغناطيسي | Miltenyi Biotec | 130-091-222 | |
| إل-جلوتامين (200 مللي مولار) | Thermo Fisher Scientific | رقم الكتالوج 25030-061 | |
| المحلول المخزني لـ MACS BSA (تركيز 20x) | Miltenyi Biotec | رقم الكتالوج 130-091-376 | |
| نظام الفصل المغناطيسي | EasySep أو MACS | ||
| أعمدة جهاز مطياف الكتلة (MS) | Miltenyi Biotec | رقم الكتالوج # 130-042-201 | |
| بنسلين-ستربتوميسين | Thermo Fisher Scientific | رقم الكتالوج 15140122 | |
| بيركول (Percoll) | Cytiva/GE Healthcare, | رقم الكتالوج GE17-0891-01 | |
| أثواب واقية | Kappler ProVent | رقم الكتالوج 17-988-497B | |
| جهاز طرد مركزي مبرد | |||
| بيروفات الصوديوم (100 مللي مولار) | Thermo Fisher Scientific | رقم الكتالوج 11360070 | |
| ملقط العينات | VWR | رقم الكتالوج 82027-440 | رقم كتالوج بديل 82027-438 |
| مشارط معقمة صالحة للاستخدام مرة واحدة | Cardinal Health | رقم الكتالوج 11213-237 | بديل VWR رقم الكتالوج 89140-800 |
| إنزيم TrypLE Express (1x)، أحمر الفينول | ThermoFisher | رقم الكتالوج 1250510 |
المراجع
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.