يقدم هذا البروتوكول منصة تحفيز مغناطيسي نانوية متوافقة مع المجهر، تدمج جسيمات نانوية فائقة المغناطيسية فلورية، ومغناطيس كهربائي معاير، وتصويراً بؤرياً في الوقت الفعلي لتحفيز خلايا شوان عن بُعد وبشكل يمكن التحكم فيه، ومراقبة استجاباتها الحسية الميكانيكية ديناميكياً.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
منصة تحفيز مغناطيسية نانوية للتحفيز الميكانيكي عن بُعد والقابل للتحكم لخلايا شوان مع التصوير البؤري المتزامن في الوقت الفعلي
في هذه المقالة
ملخص
الملخص
تنظم القوى الميكانيكية السلوك الخلوي بشكل حاسم، ومع ذلك تعتمد العديد من الطرق الحالية للتحفيز الميكانيكي على الاتصال الفيزيائي المباشر أو البيئات خارج الخلوية المصممة اصطناعيًا، مما يحد من مرونتها في دراسات الخلايا الحية الديناميكية. نقدم هنا منصة تحفيز نانوي مغناطيسي للتحفيز الميكانيكي عن بُعد وبدون تلامس وبشكل يمكن التحكم فيه لخلايا شوان in vitro. يتيح هذا الإعداد المتكامل التحفيز المغناطيسي عن بُعد والتصوير المتزامن للخلايا الحية في نفس الجلسة التجريبية. تصف هذه المخطوطة تحضير الجسيمات النانوية المغناطيسية فائقة المغناطيسية الفلورية (SPIONs)، وبخيار إضافي، الجسيمات النانوية المغناطيسية الوظيفية التي تستهدف الأكتين (f-SPIONs)، وبناء ومعايرة جهاز تحفيز كهرومغناطيسي متوافق مع المجهر، وتقدير القوى المغناطيسية على مستوى الجسيم الواحد والخلية الواحدة، ودمج التحفيز المغناطيسي مع التصوير المجهري البؤري في الوقت الفعلي. تعد خلايا شوان خلايا دبقية حساسة للغاية للميكانيكا وتلعب أدوارًا أساسية في تطور الأعصاب الطرفية وصيانتها وإصلاحها. يعد الرصد في الوقت الفعلي لاستجاباتها للتحفيز الميكانيكي أمرًا بالغ الأهمية لفهم كيفية تأثير القوى الميكانيكية على تنظيم الهيكل الخلوي والسلوك الخلوي. توفر هذه المنصة سير عمل قابل للتكرار لدراسة الميكانيكا الحيوية لخلايا شوان، ويمكن تكييفها مع أنواع أخرى من الخلايا المستجيبة ميكانيكيًا والأنظمة متعددة الخلايا.
المقدمة
تنظم الإشارات الميكانيكية مجموعة واسعة من العمليات الخلوية، بما في ذلك الالتصاق، والهجرة، والتكاثر، والتمايز، واللدونة المظهرية1,2,3. وقد أظهرت الدراسات في علم الأحياء الميكانيكي أن كلًا من الخلايا العصبية والخلايا الدبقية تظهر حساسية واستجابة ميكانيكية ملحوظة طوال فترة النمو4,5,6,7. وللبحث في كيفية استشعار الخلايا للقوة والاستجابة لها، تم تطوير عدة مناهج تجريبية، تشمل مجهر القوة الذرية (AFM)، وشفط الماصة الدقيقة، والملاقط الضوئية، وأنظمة الزرع القائمة على التمدد، والمنصات المائعية الدقيقة8,9,10,11,12. وقد ساهمت هذه التقنيات بشكل كبير في تطوير دراسة تحويل الإشارات الميكانيكية. ومع ذلك، فإن العديد منها يتطلب اتصالاً فيزيائيًا مباشرًا بالخلايا أو يعتمد على بيئات ميكانيكية اصطناعية محددة مسبقًا، مما يجعلها أقل ملاءمة للتحفيز عن بُعد، والقابل للتحكم الديناميكي، والمتوافق مع التصوير.
يوفر تسليم القوة بوساطة الجسيمات النانوية المغناطيسية استراتيجية بديلة للتحفيز الميكانيكي عن بُعد13,14,15,16,17,18. ونظرًا لأن معظم الأنسجة البيولوجية تظهر استجابة مغناطيسية منخفضة، يمكن للمجالات المغناطيسية المطبقة خارجيًا أن تخترق العينات البيولوجية دون تلامس مباشر، وتؤثر بشكل انتقائي على الجسيمات المستجيبة مغناطيسيًا والتي يتم إيصالها إلى الخلايا أو الأنسجة. وفي وجود تدرج في المجال المغناطيسي، تتعرض هذه الجسيمات لقوى توجيهية يمكن استخدامها لفرض اضطرابات ميكانيكية على المستوى دون الخلوي، أو الخلوي، أو مستوى النسيج8,9. ويعد هذا النهج جذابًا لأنه غير تلامسي، وقابل للضبط، ومتوافق مع التصوير الحي، ومن المحتمل أن يكون قابلاً للتوسع ليشمل أنظمة بيولوجية أكثر تعقيدًا.
تُعد خلايا شوان (Schwann cells) خلايا دبقية شديدة الحساسية للميكانيكا19,20، وتلعب أدواراً حاسمة في تطور الأعصاب الطرفية وصيانتها وإصلاحها21,22. وتعتبر الملاحظة الديناميكية لاستجابات خلايا شوان للتحفيز الفيزيائي أمراً هاماً لفهم كيفية تنظيم القوة لتنظيم الهيكل الخلوي وسلوك الخلية. ومع ذلك، فإن العديد من أنظمة توصيل القوة التقليدية لا تتوافق بسهولة مع المجهر عالي الدقة في الوقت الفعلي. ولمعالجة هذا القصور، قمنا بتطوير منصة تشغيل مغناطيسية نانوية تجمع بين جسيمات مغناطيسية فائقة فلورية (f-SPIONs) تستهدف هيكل الأكتين الخلوي، وجهاز كهرومغناطيسي مخصص متوافق مع منصة المجهر البؤري، وإطار عمل كمي لتقدير القوة. يتيح هذا الإعداد المتكامل التحفيز المغناطيسي عن بُعد والتصوير المتزامن للخلايا الحية في نفس الجلسة التجريبية.
يتضمن سير العمل الموصوف هنا تحضير الجسيمات المغناطيسية الفائقة الفلورية (SPIONs)، والوظيفية الاختيارية القائمة على الفالويدين لاستهداف الأكتين لإنتاج f-SPIONs، وتوصيف الجسيمات النانوية، وبناء الجهاز الكهرومغناطيسي ومعايرة المجال، وتقدير القوة المغناطيسية، والتحفيز المغناطيسي المدمج مع التصوير البؤري في الوقت الفعلي. وعلى الرغم من تحسين هذه المنصة هنا لخلايا شوان، إلا أنها قد توفر إطاراً عملياً للدراسات ذات الصلة في الأنظمة الحية الأخرى المستجيبة ميكانيكياً.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
استخدمت التجارب الموضحة في هذا البروتوكول خط خلايا شوان للجرذان المعتمد (RSC96)، ولم تتضمن مشاركين بشريين أو حيوانات حية. وقد أُجريت هذه الدراسة كجزء من مشروع بحثي أوسع يتضمن تجارب على الحيوانات، والذي تمت الموافقة عليه من قبل لجنة رعاية الحيوان وأخلاقياته في المستشفى الأول بجامعة جيلين (رقم الموافقة 2022-0045).
1. تحضير الجسيمات الفائقة المغناطيسية الفلورية
- تخليق جسيمات Fe₃O₄ النانوية المغلفة بحمض الأوليك.
ملاحظة: تم تخليق جسيمات Fe₃O₄ النانوية المغلفة بحمض الأوليك عن طريق التحلل الحراري كما تم وصفه سابقاً20,23.- أضف 2 mmol من Fe(acac)₃، و6 mmol من حمض الأوليك، و6 mmol من الأوليل أمين، و5 mmol من 1,2-hexadecanediol إلى 20 mL من بنزيل إيثر في دورق تفاعل.
- قلب الخليط تحت جو من النيتروجين لمدة 15 min حتى يتم الحصول على محلول سلائف متجانس.
- سخن الخليط إلى 200 °C بمعدل 20 °C/min.
- حافظ على التفاعل عند 200 °C لمدة 30 min.
- ارفع درجة الحرارة إلى 265 °C وقم بتكثيف الخليط (reflux) لمدة 30 min.
- اترك خليط التفاعل ليبرد طبيعياً حتى درجة حرارة الغرفة.
- اجمع جسيمات Fe₃O₄ النانوية عن طريق الفصل المغناطيسي.
- اغسل الجسيمات النانوية 3 مرات باستخدام الإيثانول.
- أعد تشتيت الجسيمات النانوية المنقاة في التولوين.
- تجميع الجسيمات الفائقة Fe₃O₄·Cy3.5.
ملاحظة: تم تحضير الجسيمات الفائقة Fe₃O₄·Cy3.5 كما تم وصفه سابقاً20,24,25.- شتت 28 mg من جسيمات Fe₃O₄ النانوية المغلفة بحمض الأوليك في 4 mL من التولوين في دورق مستدير القاع ثلاثي العنق سعة 50 mL.
- حضّر طوراً مائياً يحتوي على 12.5 mg من دوديسيل كبريتات الصوديوم و3 mg من صبغة Cyanine 3.5 (Cy 3.5) في 12.5 mL من الماء.
- اجمع معلق جسيمات Fe₃O₄ النانوية في التولوين (28 mg في 4 mL؛ أي 7 mg/mL) مع محلول المادة الخافضة للتوتر السطحي/الصبغة المائية لتكوين مستحلب دقيق من زيت في ماء.
- امزج جيداً حتى يتم الحصول على مستحلب مستقر.
- سخن الدورق المستدير القاع ثلاثي العنق إلى 60 °C وقلب باستمرار بسرعة 300 rpm لمدة 6 h.
ملاحظة: لا يلزم إجراء عملية تبخير تحت ضغط منخفض أو تبخير دوراني. - بخر التولوين تحت الظروف الموضحة أعلاه لتحفيز تجميع جسيمات Fe₃O₄ النانوية. باستخدام ماصة نقل تستخدم لمرة واحدة، انقل كمية صغيرة من المحلول إلى أنبوب اختبار واتركها لفترة. يشير عدم حدوث انفصال في الأطوار إلى إزالة التولوين تماماً.
- انقل معلق الجسيمات الفائقة Fe₃O₄·Cy3.5 إلى أنابيب طرد مركزي سعة 15 mL. قم بالطرد المركزي عند 2,370 × g لمدة 5 min في درجة حرارة الغرفة لجمع الجسيمات الفائقة، وتخلص من الراشح بعناية دون تحريك الراسب.
- أعد تشتيت الراسب في ماء منزوع الأيونات فائق النقاء وقم بالطرد المركزي مرة أخرى عند 2,370 × g لمدة 5 min في درجة حرارة الغرفة. تخلص من الراشح وكرر إجراء الغسل ثلاث مرات لإزالة بقايا صبغة Cy3.5 الحرة ودوديسيل كبريتات الصوديوم.
- تغليف الجسيمات الفائقة بالبوليدوبامين (PDA).
ملاحظة: تم تحضير الجسيمات الفائقة المغلفة بالبوليدوبامين كما تم وصفه سابقاً20,26.- قم بالطرد المركزي لمعلق الجسيمات الفائقة Fe₃O₄·Cy3.5 عند 2,370 × g لمدة 5 min في درجة حرارة الغرفة، وتخلص من الراشح.
- أعد تشتيت الراسب في محلول Tris المنظم بتركيز 10 mM (pH 8.5).
- أضف 26 mg من مونومر الدوبامين إلى المعلق.
- قلب الخليط في درجة حرارة الغرفة لمدة 3 h تحت ظروف قلوية.
- قم بالطرد المركزي للمعلق عند 2,370 × g لمدة 5 min في درجة حرارة الغرفة.
- أزل الراشح وأعد تشتيت الراسب في ماء فائق النقاء للحصول على جسيمات Fe₃O₄·Cy3.5@PDA (SPIONs).
- تفعيل الجسيمات اختيارياً باستخدام phalloidin-Alexa Fluor 350.
ملاحظة: تم تفعيل سطح الجسيمات الفائقة باستخدام phalloidin-Alexa Fluor 350 المتاح تجارياً20.- حضّر 5 mL من محلول مائي يحتوي على 100 units من phalloidin-Alexa Fluor 350.
- أضف 200 µL من معلق Fe₃O₄·Cy3.5@PDA الذي يحتوي على 2 mg من الجسيمات إلى المحلول.
- قلب الخليط بلطف في درجة حرارة الغرفة لمدة 24 h.
- قم بالطرد المركزي للخليط عند 2,370 × g لمدة 5 min في درجة حرارة الغرفة.
- تخلص من الراشح وأعد تشتيت الراسب في ماء منزوع الأيونات.
- خزن تركيبة Fe₃O₄·Cy3.5@PDA@phalloidin النهائية (f-SPIONs) محمية من الضوء حتى وقت الاستخدام.
2. توصيف الجسيمات النانوية
- تحديد المورفولوجيا والحجم.
- تحضير عينات الجسيمات النانوية للفحص بالمجهر الإلكتروني النافذ (TEM) أو المجهر الإلكتروني النافذ عالي الدقة (HRTEM) وفقاً لمتطلبات الجهاز.
- التقاط صور لتحديد المورفولوجيا العامة للجسيمات، وبنية اللب والغلاف (core-shell)، ومتوسط القطر (الشكل 1).
- تحضير معلقات مائية من الجسيمات النانوية لقياس تشتت الضوء الديناميكي (DLS).
- قياس القطر الهيدروديناميكي ومؤشر التشتت المتعدد (PDI).
- مقارنة نتائج المجهر الإلكتروني ونتائج DLS لتقييم تجانس التركيبة والسلوك الغرواني.
- تحديد الخصائص المغناطيسية.
- تحضير عينات جسيمات نانوية مجففة أو مركزة مناسبة لتحليل جهاز التداخل الكمي فائقة التوصيل (SQUID).
- تسجيل منحنيات التخلف المغناطيسي عند 300 K.
- تحديد مغناطيسية التشبع، والمغناطيسية المتبقية، والقسرية.
- التأكد من أن الجسيمات تظهر سلوكاً بارامغناطيسياً فائقاً مع مغناطيسية متبقية وقسرية مهملة.
- تحديد خصائص الفلورة.
- تحضير معلق من f-SPION في ماء منزوع الأيونات فائق النقاء ونقل المعلق إلى كيوفيت كوارتز.
- تسجيل أطياف التلألؤ الضوئي باستخدام مقياس طيف الفلورة.
- التأكد من أن إشارة الفلورة تظل قابلة للكشف بعد الغسل وإعادة التعليق.
- التحقق من التموضع المرتبط بالأكتين عند استخدام التركيبة المستهدفة.
- الحصول على خلايا RSC96.
ملاحظة: خلايا RSC96 المستخدمة في هذه الدراسة، وهي سلالة خلايا شوان جرذ محولة تلقائياً تم تأسيسها من خلال زراعة طويلة الأمد لخلايا شوان أولية من الجرذ، تم الحصول عليها من بنك الخلايا التابع للأكاديمية الصينية للعلوم، شنغهاي، الصين (CSTR: 19375.09.3101RATGNR6) واختُبرت وكانت سلبية للميكوبلازما والتلوث الفطري. استُخدمت الخلايا في الممرات من 3–10. - زراعة الخلايا في وسط Dulbecco’s modified Eagle medium (DMEM) مكمل بـ 10% مصل بقري جنيني (FBS) و1% محلول بنسلين-ستربتومايسين (100 U/mL بنسلين و100 µg/mL ستربتومايسين).
- استزراع خلايا RSC96 بكثافة 1 × 10⁵ خلية لكل طبق مجهري لزراعة الخلايا بحجم 35 mm وزراعتها لمدة 24 h عند 37 °C في جو مرطب يحتوي على 5% CO₂ للسماح بالتصاق الخلايا.
- سحب وسط الزراعة الموجود، وغسل الخلايا مرتين بمحلول ملحي منظم بالفوسفات (PBS)، وإضافة وسط زراعة كامل يحتوي على 15 µg/mL من f-SPIONs. تحضين الخلايا مع f-SPIONs لمدة 12 h.
- سحب وسط الزراعة وغسل الخلايا مرتين بمحلول PBS مبرد يحتوي على 1 mM ديفيروكسامين لإزالة الجسيمات غير الممتصة داخلياً بشكل تام.
- التقاط صور مجهرية بؤرية (confocal) لتقييم التوزيع داخل الخلوي للجسيمات. ضبط معايير التصوير على ثقب دبوسي (pinhole) بمقدار 1 Airy unit (AU) وخطوة z بمقدار 0.43 µm للحصول على مقاطع بصرية عالية الدقة للهياكل داخل الخلوية.
- فحص ما إذا كانت الجسيمات تظهر تركيزاً في المناطق الخلوية المرتبطة بالأكتين.
- الحصول على خلايا RSC96.
3. بناء ومعايرة جهاز التحفيز الكهرومغناطيسي (الشكل 2)
- تجميع الجهاز الكهرومغناطيسي.
- بناء نظام ملف كهرومغناطيسي مدمج بحجم يتناسب مع منصة المجهر البؤري (confocal microscope) وغرفة الخلايا الحية (الشكل 2A،B).
- توصيل الملف بمصدر طاقة قابل للتحكم أو مصدر تيار خارجي.
- محاكاة بيئة المجال المغناطيسي المتدرج رقميًا باستخدام برنامج COMSOL Multiphysics 4.3b (الشكل 2C،D).
- التأكد من أن المغناطيس الكهربائي يولد المجال المغناطيسي المتدرج (GMF) المقابل تحت تيارات دخل مختلفة (الشكل 2G).
- قياس كثافة التدفق المغناطيسي ومعايرة المجال المغناطيسي المتدرج.
- وضع المغناطيس الكهربائي بجانب طبق الزرع، بحيث يكون طرف القطب موجهًا نحو مركز الطبق وعلى بعد 1 mm من الجدار الخارجي للطبق (الشكل 2E،F).
- الحفاظ على هذا التكوين الهندسي النسبي بين المغناطيس الكهربائي وطبق الزرع خلال جميع تجارب تحفيز القوة المغناطيسية وتصوير الخلايا الحية اللاحقة.
- استخدام مقياس غاوس الرقمي (digital Gauss meter) لقياس كثافة التدفق المغناطيسي في مواضع محددة مسبقًا ضمن منطقة التحفيز، مع استخدام شبكة تحديد المواقع الموجودة في قاع طبق الزرع كمرجع مكاني.
- حساب تدرج المجال المحلي من التغير المكاني في كثافة التدفق المغناطيسي.
- معايرة والتحقق من صحة تدرج المجال المغناطيسي الذي تمت محاكاته رقميًا باستخدام قيم تدرج المجال المغناطيسي المقاسة والمحسوبة تجريبيًا.
4. تقدير القوى المغناطيسية التي توفرها المنصة.
- تحديد نموذج تقدير القوة.
- استخدام معادلة القوة للجسيمات النانوية المغناطيسية في مجال مغناطيسي غير منتظم27,28:
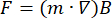
- بناءً على افتراض المحاذاة البارامغناطيسية الفائقة مع المجال المسلط، يتم تبسيط المعادلة إلى
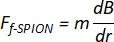
حيث:
F هي القوة النانو-مغناطيسية
m هو عزم ثنائي القطب المغناطيسي
 هو تدرج المجال المغناطيسي
dB/dr هو تدرج المجال المغناطيسي (T/m) الناتج عن جهاز توليد المجال المغناطيسي المقابل. - استخدام تدرج المجال المقاس من الجهاز المعاير في جميع الحسابات.
- استخدام معادلة القوة للجسيمات النانوية المغناطيسية في مجال مغناطيسي غير منتظم27,28:
- تقدير القوة المؤثرة على جسيم نانوي واحد.
- تحديد متوسط أبعاد الجسيمات من صور HRTEM.
- حساب حجم النواة المغناطيسية بافتراض هندسة كروية.
- تقدير الحجم المغناطيسي النوعي لـ Fe₃O₄ بناءً على الكسر المغناطيسي للنواة.
- حساب عزم ثنائي القطب المغناطيسي وفقاً لـ
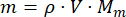
حيث:
Mm تمثل مغنطة الكتلة لـ f-SPIONs (16 A·m2/kg) تحت شدة المجال المحددة؛
ρ هي كثافة Fe₃O₄ (5.24 g/cm3).
V هو حجم النواة المغناطيسية لـ Fe₃O₄ داخل كل f-SPION (5.89 × 10⁻17 cm3). - ضرب عزم ثنائي القطب في تدرج المجال المقاس لتقدير القوة المؤثرة على جسيم نانوي واحد (
 ).
- تقدير امتصاص الجسيمات النانوية لكل خلية شوان.
- زراعة خلايا شوان RSC96 بمعدل 5 × 10⁵ خلية لكل بئر في أطباق مجهرية لزراعة الخلايا مقاس 35 mm.
- تحضين الخلايا لمدة 24 h تحت ظروف الزراعة القياسية.
- استبدال الوسط بوسط جديد يحتوي على 15 µg/mL من f-SPIONs.
- تحضين الخلايا لمدة 12 h إضافية.
- غسل الخلايا مرتين بمحلول ملحي منظم بالفوسفات مبرد بالثلج يحتوي على 1 mM من الديفيروكسامين.
- جمع الخلايا وعدّها.
- قياس محتوى الحديد داخل الخلايا باستخدام مطيافية الانبعاث الذري للبلازما المقترنة بالحث (ICP-AES).
- حساب عدد الجسيمات الممتصة داخلياً لكل خلية عن طريق قسمة متوسط كتلة الحديد لكل خلية على كتلة الحديد لكل جسيم
 .
- تقدير القوة المسلطة على خلية شوان واحدة.
- حساب القوة على مستوى الخلية وفقاً لـ
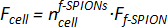
حيث:
هي القوة المغناطيسية المؤثرة على f-SPION واحدة.
 هو عدد f-SPIONs الممتصة داخلياً لكل خلية.
Fcell هي القوة المغناطيسية المؤثرة على خلية واحدة. - تسجيل القيمة الناتجة كقوة مغناطيسية تقديرية مسلطة على خلية شوان واحدة (Fcell).
- التوضيح بجلاء أن القيمة هي تقدير قائم على نموذج وليست قياساً مباشراً للقوة داخل الخلايا.
- حساب القوة على مستوى الخلية وفقاً لـ
5. دمج التحفيز المغناطيسي مع التصوير المجهري متحد البؤرة بالليزر (CLSM) في الوقت الفعلي
- تحميل خلايا شوان بالجسيمات النانوية المغناطيسية.
- ازرع خلايا شوان في أطباق زراعة ibidi متوافقة مع التصوير أو في غرف زراعة مائعية دقيقة.
- اترك الخلايا لتلتصق وتتعافى.
- استبدل الوسط الحالي بوسط زراعي جديد يحتوي على 15 µg/mL جسيمات أكسيد الحديد النانوية فائقة المغناطيسية الوظيفية.
- تُحضن الخلايا لمدة 12 ساعة للسماح بتحميل جزيئات أكسيد الحديد فائقة المغناطيسية الوظيفية (f-SPION).
- افحص مورفولوجيا الخلايا قبل المتابعة.
- إزالة الجسيمات غير الممتصة داخلياً.
- أزل الوسط الذي يحتوي على الجسيمات النانوية.
- اغسل الخلايا مرتين بمحلول PBS يحتوي على 1 مللي مولار من الديفيروكسمين.
- استبدل محلول الغسيل بوسط زراعة خلايا حية متوافق مع التصوير.
- تأكد من انخفاض خلفية الجسيمات خارج الخلية قبل التصوير.
- قم بدمج جهاز المغناطيس الكهربائي مع نظام التصوير بالمجهر متحد البؤرة الماسح بالليزر (CLSM).
- قم بتجميع المغناطيس الكهربائي مع غرفة زراعة الخلايا الحية، مع وضع المغناطيس الكهربائي في موقعه الذي تمت معايرته مسبقاً.
- ضع غرفة استزراع الخلايا الحية المُجمعة على منصة المجهر البؤري (confocal microscope)الشكل 3). تأكد من وضع طبق المزرعة ضمن منطقة التحفيز الفعالة (الشكل 3أ).
- قم بتنشيط المغناطيس الكهربائي وفقاً للمعلمات المحددة مسبقاً، وتحقق من التعرض الفعال للمجال المغناطيسي المتدرج ضمن منطقة طبق المزرعة (الشكل 3ب).
- تأكد من قدرة العدسة الشيئية على الوصول إلى المستوى البؤري دون أي تداخل.
- تأكد من أن الجهاز لا يعيق وضع العدسة الشيئية أو حركة المنصة.
- مع مراعاة الحرارة المتولدة أثناء تشغيل المغناطيس الكهربائي، يتم ضبط إعدادات درجة حرارة مكونات غرفة الخلايا الحية وفقاً لظروف الزرع المثلى المحددة مسبقاً لضمان بيئة داخلية تبلغ 37 °C و5% من ثاني أكسيد الكربون (CO₂)الشكل 3ج).
- تأكد من أن النظام بأكمله يعمل بشكل طبيعي ومستقر.
- الكالسيوم الوظيفي (Functional Ca)2التصوير بـ ⁺ في الخلايا الحية.
- قم بتحضين الخلايا باستخدام محلول كريبس-رينغر (الرقم الهيدروجيني 7.4) المحتوي على 3 µM Fluo-4 AM و0.1% Pluronic F-127 عند 37 °C لمدة 30 دقيقة.
- بعد الحضانة، تُغسل المزارع مرتين بمحلول PBS وتُنقل إلى منصة تصوير الخلايا الحية في نظام المجهر متحد البؤر الماسح (CLSM) من أجل التصوير (الشكل 4أ).
- باستخدام شبكة تحديد المواقع الموجودة في قاع طبق زراعة ibidi، قم بتصوير خمسة مواقع محددة مسبقاً.
- قسّم كل مجال تصوير بالتساوي إلى 25 منطقة، واختر من 0 إلى 3 خلايا من كل منطقة للقياس الكمي للفلورة، وذلك بناءً على كثافة الخلايا الفعلية داخل تلك المنطقة.
- حدد المخطط الخارجي الكامل لخلية فردية باعتباره المنطقة المستهدفة (ROI)، وراقب استجابة الكالسيوم المستحثة مغناطيسياً عن طريق تحليل التغيرات في شدة الفلورسنت (ΔF) ضمن المنطقة المستهدفة.
- احسب التغير في شدة الفلورة وفقاً للمعادلة ΔF = (Fتحفيز - F0). يتم حساب التغير في شدة الفلورة قبل التحفيز وبعده (ΔF/F)0تتجاوز 10%، وتُعتبر حدث استجابة للكالسيوم.
ملاحظة: Fغير محفز تمثل شدة الفلورة قبل التحفيز بالقوة المغناطيسية، F0 يمثل شدة الفلورة المرجعية، و Fتحفيز تمثل شدة الفلورة المستثارة بعد التحفيز بالقوة المغناطيسية. - لتصحيح الخلفية، اطرح متوسط شدة فلورية الخلفية المقاسة في منطقة خالية من الخلايا من قيمة شدة الفلورية لكل منطقة اهتمام (ROI).
- أجرِ ثلاث تجارب مستقلة، بحيث يتضمن كل منها طبق استنبات واحدًا.
- قم بإجراء التصوير بنظام الفاصل الزمني (time-lapse imaging) وقم بتطبيق التحفيز المغناطيسي أثناء التصوير.
- اضبط معايير التصوير بالفاصل الزمني كما يلي: فاصل زمن الاستحواذ 2.1 ثانية لكل إطار، ومدة استحواذ إجمالية قدرها 650 ثانية، وتصوير مقطعي بصري قياسي عالي الدقة باستخدام 1 AU.
- أثناء التصوير الخلوي، يتم التقاط الصور بشكل مستمر لمدة 50 ثانية دون إدخال تيار كهربائي لتسجيل كثافة فلورية الكالسيوم داخل الخلايا في غياب التحفيز بالقوة المغناطيسية (Fغير محفز) (الشكل 2H و الشكل 4ب).
- قم بتطبيع شدة الفلورة المسجلة خلال أول 50 ثانية وتعريفها على أنها شدة الفلورة المرجعية (F₀).0).
- بعد ذلك، يتم تطبيق تيار دخل ثابت قدره 3.0 أمبير على المغناطيس الكهربائي، مما يعرض خلايا شوان المحملة بجسيمات نانوية مغناطيسية لمجال مغناطيسي متدرج قدره 3.25 تسلا/متر، وبالتالي إخضاعها لتحفيز بالقوة المغناطيسية. استمر في التصوير بالفاصل الزمني لمدة 10 دقائق لتسجيل شدة فلورية الكالسيوم داخل الخلايا أثناء التحفيز بالقوة المغناطيسية (Fتحفيز) (الشكل 2H و الشكل 4ج).
- احسب كمياً التغير في شدة الفلورة كـ ΔF/F0 (الشكل 4د,هـ).
- إجراء التحليل الإحصائي وتحليل الكالسيوم (Ca)2بيانات الفلورة⁺.
- احسب قيمة الوسيط لـ ΔF/F₀ لكل خلية عبر السلسلة الزمنية التي تم تحليلها، واستخدم هذه القيمة كقيمة Ca على مستوى الخلية.2مقياس الاستجابة ⁺.
- أجرِ ثلاث تجارب مستقلة لكل حالة تجريبية، بحيث يتم استخدام طبق زراعة واحد لكل حالة في كل تجربة. قم بتجميع الخلايا التي تم تحليلها عبر التجارب المستقلة الثلاث لغرض العرض الوصفي، وقم بتقرير قيمة n كإجمالي عدد الخلايا التي تم تحليلها في كل مجموعة.
- قيم طبيعية بيانات ΔF/F₀ على مستوى الخلية باستخدام اختبار كولموغوروف-سميرنوف.
- بسبب الـ Ca2إذا كانت بيانات الاستجابة الفلورية غير موزعة توزيعاً طبيعياً، فاعرض البيانات كقيمة الوسيط والمدى الربيعي (IQR).
- تحليل الفروق بين المجموعات باستخدام اختبار فريدمان (Friedman test) غير المعلمي، يليه إجراء اختبارات ويلكوكسون للرتب الموقعة (Wilcoxon signed-rank tests) للمقارنات الزوجية، وفقاً لما تم تقريره سابقاً.
- ضع في اعتبارك P < 0.05 للدلالة على الأهمية الإحصائية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
أظهر المجهر الإلكتروني النافذ عالي الدقة (HRTEM) أن التركيبة النهائية للجسيمات النانوية امتلكت لباً مغناطيسياً متكتلاً وغلافاً خارجياً بعد تعديل السطح (الشكل 1). وكان متوسط القطر الكلي لـ f-SPIONs النهائية 63.36 ± 16.65 nm، مع لب مغناطيسي غني بـ Fe₃O₄ يبلغ قطره حوالي 56.60 ± 6.19 nm، وغلاف خارجي يتكون من البوليدوبامين و phalloidin-Alexa Fluor 350 بمتوسط سمك يبلغ حوالي 5.79 ± 1.36 nm. وأكدت هذه النتائج النجاح في بناء بنية جسيمات فائقة مناسبة للتفعيل المغناطيسي والتصور القائم على الفلورة.
...الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
تُعرف جسيمات أكسيد الحديد النانوية على نطاق واسع بأنها مواد نانوية مغناطيسية ذات توافق حيوي ملائم. وباعتبارها عوامل تباين مستخدمة بكثرة في التصوير بالرنين المغناطيسي، فقد طُبقت جسيمات Fe₃O₄ النانوية ذات المغناطيسية الفائقة بشكل مكثف في التشخيص التصويري السريري29,30. وفي دراسة حديثة أجرتها مجموعتنا20، ثبت أن f-SPIONs تظهر سمية خلوية منخفضة للغاية وأماناً حيوياً ممتازاً. وقد قامت منصة التحفيز المغناطيسي النانوي، التي تم بناؤها باستخدام f-SPI...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
يقر المؤلفون بعدم وجود تضارب في المصالح المالية.
شكر وتقدير
تم دعم هذا العمل من قبل المؤسسة الوطنية للعلوم الطبيعية في الصين (منح رقم 82571677 و 82001304 لـ Y.W.)، والبرنامج الخاص للمواهب الطبية والرعاية الصحية في مقاطعة جيلين (منحة رقم JLSRCZX2025-134 لـ Y.W.)، ومشروع برنامج بيثون بجامعة جيلين (منحة رقم 2024B19 لـ Y.W.). يشكر المؤلفون كلية الكيمياء بجامعة جيلين (المختبر الوطني الرئيسي للبنية والمواد فوق الجزيئية)، ومعهد تشانغتشون للكيمياء التطبيقية التابع للأكاديمية الصينية للعلوم، للمساعدة في تصميم وتخليق وتوصيف المواد النانوية. كما يشكر المؤلفون معهد الطب الانتقالي في المستشفى الأول بجامعة جيلين للمساعدة في تصوير CLSM.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1,2-هكساديكانيديول | Sigma-Aldrich | 213748 | درجة تقنية، 90%؛ يُستخدم في تخليق التحلل الحراري |
| ibidi مقاس 35 ملم µ-أطباق | ibidi | 80156 | تُستخدم لزراعة خلايا شوان وتصويرها |
| بنزيل إيثر | Sigma-Aldrich | 108014 | %98؛ مذيب للحديد (Fe)3O4 تخليق الجسيمات النانوية |
| المجهر الليزري الماسح البؤري | Nikon | AXR (Ti2-E) | تُستخدم للتصوير الفلوري وتصوير الخلايا الحية |
| مغناطيس كهربائي مخصص | مصمم خصيصاً | نظرًا لعدم توفر نص مصدر، يرجى تزويدي بالنص الإنجليزي المراد ترجمته وسأقوم بتحويله إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المحددة. | مغناطيس كهربائي أحادي القطب مدمج لتوليد مجال مغناطيسي متدرج في المختبر |
| حمض سيانين 3.5 الكربوكسيلي | Duofluor Inc. | D10128 | صبغة فلورسنتية تُستخدم للكشف عن الحديد (Fe)3أو4·تجميع الجسيمات الفائقة Cy3.5؛ الوزن الجزيئي 593.20؛ تُحفظ في درجة حرارة -20 °C، مع الحماية من الضوء |
| ملح ميسيلات الديفيروكسامين | Sigma-Aldrich | D9533 | عامل مخلبي للحديد يُستخدم لإزالة الحديد غير المُدمج داخلياً والمرتبط بالغشاء |
| مقياس غاوس الرقمي | مغناطيس WEITE | WT103 | تُستخدم لقياس كثافة التدفق المغناطيسي ومعايرة المجال المغناطيسي المتدرج الذي يولده المغناطيس الكهربائي المخصص. |
| هيدروكلوريد الدوبامين | Sigma-Aldrich | H8502 | ≥98% (كروماتوغرافيا الطبقة الرقيقة)؛ يُستخدم لطلاء البولي دوبامين |
| جهاز تشتت الضوء الديناميكي | Malvern Instruments | Zetasizer Nano-ZS | تُستخدم لقياس القطر الهيدروديناميكي ومؤشر التشتت المتعدد (PDI) |
| Fluo-4 AM | Invitrogen, Thermo Fisher Scientific | F14201 | مؤشر الكالسيوم المستخدم لقياس Ca في الخلايا الحية2+ التصوير |
| مقياس الطيف الفلوري | Shimadzu | RF-6000 | تُستخدم لتوصيف التألق الضوئي |
| مجهر إلكتروني نافذ عالي الدقة | JEOL | JEM-F200 | تُستخدم لتصوير مورفولوجيا الجسيمات النانوية ونواتها باستخدام المجهر الإلكتروني النافذ عالي الدقة (HRTEM)–البنية القشرية |
| مقياس طيف الانبعاث الذري ببلازما مقترنة حثياً | PerkinElmer | Optima 3300 DV | تُستخدم لتقدير كمية الحديد داخل الخلايا |
| أسيتيل أسيتونات الحديد (III)، Fe(acac)3 | Sigma-Aldrich | F300 | 97%؛ طليعة للحديد (Fe)3أو4 تخليق الجسيمات النانوية |
| حاضنة فوقية للمنصة لتصوير الخلايا الحية | TOKAI HIT | TENP&أول أكسيد الكربون2 | تُستخدم للتصوير البؤري لخلية حية أثناء التحفيز المغناطيسي |
| حمض الأوليك | Sigma-Aldrich | O1008 | ≥99% (كروماتوغرافيا غازية)؛ ربيطة سطحية للحديد (Fe)3أو4 تخليق الجسيمات النانوية |
| أوليل أمين | Sigma-Aldrich | O7805 | درجة تقنية، 70%؛ ربيطة لتخليق الجسيمات النانوية |
| فالوليدين–Alexa Fluor 350 | Invitrogen, Thermo Fisher Scientific | A22281 | كاشف وظيفي اختياري لاستهداف الأكتين |
| بلورونيك F-127 | Invitrogen, Thermo Fisher Scientific | P3000MP | تُستخدم لتسهيل تحميل Fluo-4 AM لقياس أيونات الكالسيوم (Ca) في الخلايا الحية2+ التصوير الطبي |
| مصدر طاقة تيار مستمر منظم قابل للبرمجة | تونغمن | eTM-L605SPL (60 فولت، 5 أمبير) | تُستخدم لتغذية المغناطيس الكهربائي المخصص لتوليد مجال مغناطيسي متدرج في المختبر (in vitro) |
| خلايا شوان RSC96 | بنك الخلايا التابع للأكاديمية الصينية للعلوم | لا ينطبق | سلالة خلايا شوان المشتقة من الجرذ |
| دوديسيل كبريتات الصوديوم (SDS) | Sigma-Aldrich | 436143 | كاشف ACS، ≥99.0%؛ عامل خافض للتوتر السطحي لمستحلب دقيق من نوع زيت في ماء |
| مقياس المغناطيسية SQUID | Quantum Design Inc. | MPMS-XL | تُستخدم لقياس التخلف المغناطيسي عند درجة حرارة 300 كلفن |
| التولوين | Sigma-Aldrich | 244511 | لامائي، 99.8%؛ مذيب لتجميع الجسيمات الفائقة |
| المجهر الإلكتروني النافذ | FEI | EP 5018/40، Tecnai Spirit Biotwin | تُستخدم لفحص البنية الدقيقة للأنسجة الخلوية والعصبية |
المراجع
- Cheng B, et al. Mechanobiology across timescales. Nat Rev Phys. 2025;7:621-44.
- Di X, et al. Cellular mechanotransduction in health and diseases: from molecular mechanism to therapeutic targets. Signal Transduct Target Ther. 2023;8:282.
- Pillai EK, Franze K. Mechanics in the nervous system: from development to disease. Neuron. 2024;112(3):342-61.
- Franze K. The mechanical control of nervous system development. Development. 2013;140(15):3069-77.
- Franze K, Guck J. The biophysics of neuronal growth. Rep Prog Phys. 2010;73:094601.
- Moore SW, Sheetz MP. Biophysics of substrate interaction: influence on neural motility, differentiation, and repair. Dev Neurobiol. 2011;71(11):1090-101.
- Franze K, Janmey PA, Guck J. Mechanics in neuronal development and repair. Annu Rev Biomed Eng. 2013;15:227-51.
- Sun W, et al. Biophysical approaches for applying and measuring biological forces. Adv Sci (Weinh). 2022;9(5):e2105254.
- Mohammed D, et al. Innovative tools for mechanobiology: unraveling outside-in and inside-out mechanotransduction. Front Bioeng Biotechnol. 2019;7:162.
- Constantinou I, Bastounis EE. Cell-stretching devices: advances and challenges in biomedical research and live-cell imaging. Trends Biotechnol. 2023;41:939-50.
- Polacheck WJ, Li R, Uzel SGM, Kamm RD. Microfluidic platforms for mechanobiology. Lab Chip. 2013;13(12):2252-67.
- Li Z, et al. Non-invasive acquisition of mechanical properties of cells via passive microfluidic mechanisms: a review. Biomicrofluidics. 2021;15(3):031501.
- Xiao Y, Du J. Superparamagnetic nanoparticles for biomedical applications. J Mater Chem B. 2020;8(3):354-67.
- Yang X, et al. Nanotechnology enables novel modalities for neuromodulation. Adv Mater. 2021;33(52):e2103208.
- Semeano AT, et al. Effects of magnetite nanoparticles and static magnetic field on neural differentiation of pluripotent stem cells. Stem Cell Rev Rep. 2022;18(4):1337-54.
- Lee B, et al. Design of oxide nanoparticles for biomedical applications. Nat Rev Mater. 2025;10:252-67.
- Kim YJ, et al. Magnetoelectric nanodiscs enable wireless transgene-free neuromodulation. Nat Nanotechnol. 2025;20:121-31.
- Signorelli L, Hescham SA, Pralle A, Gregurec D. Magnetic nanomaterials for wireless thermal and mechanical neuromodulation. iScience. 2022;25(11):105401.
- Liu T, Wang Y, Lu L, Liu Y. SPIONs-mediated magnetic actuation promotes nerve regeneration by inducing and maintaining repair-supportive phenotypes in Schwann cells. J Nanobiotechnology. 2022;20:159.
- Liu T, et al. f-SPION-mediated magnetic stimulation induces reparative Schwann cell reprogramming via cytoskeletal dynamics-gated activation of Piezo1. J Nanobiotechnology. 2026;24:298.
- Jessen KR, Mirsky R, Lloyd AC. Schwann cells: development and role in nerve repair. Cold Spring Harb Perspect Biol. 2015;7(7):a020487.
- Jessen KR, Mirsky R. The repair Schwann cell and its function in regenerating nerves. J Physiol. 2016;594(13):3521-31.
- Sun S, Zeng H. Size-controlled synthesis of magnetite nanoparticles. J Am Chem Soc. 2002;124(28):8204-5.
- Zhuang J, Wu H, Yang Y, Cao YC. Controlling colloidal superparticle growth through solvophobic interactions. Angew Chem Int Ed Engl. 2008;47(12):2208-12.
- Bai F, et al. A versatile bottom-up assembly approach to colloidal spheres from nanocrystals. Angew Chem Int Ed Engl. 2007;46(35):6650-3.
- Tang L, et al. Investigating the optimal size of anticancer nanomedicine. Proc Natl Acad Sci U S A. 2014;111(43):15344-9.
- Tay A, Kunze A, Murray C, Di Carlo D. Induction of calcium influx in cortical neural networks by nanomagnetic forces. ACS Nano. 2016;10(2):2331-41.
- Tay A, Di Carlo D. Magnetic nanoparticle-based mechanical stimulation for restoration of mechano-sensitive ion channel equilibrium in neural networks. Nano Lett. 2017;17(2):886-92.
- Cheng FY, et al. Characterization of aqueous dispersions of Fe(3)O(4) nanoparticles and their biomedical applications. Biomaterials. 2005;26(7):729-38.
- Lee N, et al. Iron oxide-based nanoparticles for multimodal imaging and magnetoresponsive therapy. Chem Rev. 2015;115(19):10637-89.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً