البقوليات تشكل شراكة مع التربة بكتيريا تعمل على تكوين عقد جذرية تقوم فيها البكتيريا بتثبيت النيتروجين الجوي لاستخدام النبات. وتتيح تقنية التصوير المقطعي المحوسب الدقيق (MicroCT) تصويراً ثلاثي الأبعاد غير إتلافي للتنظيم النسيجي، ومناطق البكتيرويدات، والحزم الوعائية لهذا النسيج الصلب المعتم في العقد الجذرية، مما يوفر مزايا مقارنة بتقنيات التصوير التقليدية التي تتطلب تقطيع العقد.
مقالة منهجية
تصوير مجهري مقطعي ثلاثي الأبعاد (3D MicroCT) لعقيدات جذور Medicago sativa
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تؤدي العلاقة التكافلية بين البقوليات من نوع Medicago sativa وبكتيريا التربة Sinorhizobium meliloti إلى تكوين عقد جذرية مثبتة للنيتروجين. وقد طُبقت الطرق التدميرية التقليدية، بما في ذلك التقطيع بالشمع البارافيني، والتقطيع بجهاز الفايبراتوم، والتقطيع بالتجميد، لتصوير كيفية استيطان البكتيريا داخل العقدة، مما جعل من الصعب للغاية الحصول على معلومات موثوقة ثلاثية الأبعاد. وغالباً ما يتم دمج هذه النهج مع الوسم الفلوري أو الصبغ، مما قد يؤدي إلى إحداث إجهاد إضافي يؤثر على نمو النبات وتكوين العقد. وقد ظهر التصوير المقطعي المحوسب الدقيق (microCT) كأداة سريعة وسهلة وقوية نسبياً في بيولوجيا النبات، حيث يمكنها تصوير السمات النسيجية للنبات بشكل غير تدميري في ثلاثة أبعاد (3D)، وبالتالي تجنب العيوب الناتجة عن التدمير أثناء تحضير العينات وضمان إعادة بناء ثلاثية الأبعاد عالية الدقة. وبالرغم من تطبيق microCT على العقد الجذرية للبقوليات، إلا أنه لا يزال هناك نقص في وجود بروتوكول تفصيلي ومعتمد يوثق العملية بدءاً من حصاد النبات وتحضير العينات وصولاً إلى المسح والتصوير باستخدام البرمجيات.
نوضح في هذه الدراسة سير عمل تفصيلي للتصوير المقطعي المحوسب الدقيق (microCT) باستخدام نبات Medicago sativa كنموذج. يتضمن البروتوكول استئصال العقد من الجذور، والتثبيت، وتعزيز التباين، والتركيب، والمسح، وإعادة البناء ثلاثي الأبعاد. كما يتم تسليط الضوء على المعايير الحرجة التي تؤثر على عناصر مثل جودة الصورة، والحفاظ على الأنسجة، والتباين. وباستخدام هذا النهج، يمكن تصور التنظيم العام للأنسجة، والخلايا المصابة بالبكتيروئيدات، والحزم الوعائية في ثلاثة أبعاد دون الحاجة إلى تقطيع العقد ماديًا. يوفر مسار العمل الموصوف هنا طريقة قابلة للتكرار للتصوير غير المدمر وعالي الدقة للعقد الجذرية الطبيعية، ومن المرجح أن تكون قابلة للتكيف مع أنواع أخرى من البقوليات، مما يمنح الباحثين أداة عملية لدراسة بنية العقد والتنظيم البكتيري داخل العقد في 3D.
المقدمة
تكون النباتات في فصيلة Leguminosae (أو Fabaceae)، مثل Medicago sativa (الجlucerne/البرسيم الحجازي)، علاقة تكافلية مع بكتيريا التربة المثبتة للنيتروجين من فصيلة Rhizobiaceae مثل Sinorhizobium meliloti، مما يؤدي إلى تطور عقد جذرية. تفرز النبتة الفلافونويدات لجذب البكتيريا في ظل ظروف نقص النيتروجين. يؤدي ذلك إلى تنشيط تعبير عوامل Nod في البكتيريا التكافلية، مما يحفز التواء شعيرات الجذر وتكوين غرفة عدوى تالية تحيط بالبكتيريا1,2,3,4. يتكون خيط عدوى من جزء ضعيف في جدار الغرفة، مما يخلق أنبوباً مستطالاً يحمل البكتيريا عبر خلية شعرة الجذر5. وعندما يصل خيط العدوى إلى القشرة الداخلية، تبدأ سلسلة من انقسامات الخلايا في تكوين عضو جذري متخصص يسمى العقدة الجذرية1,2,5. بعد ذلك، تصيب البكتيريا خلية العقدة وتعيش داخل الخلايا، محاطة بغشاء السيمبيوسوم داخل الخلية. وهنا، توفر النبتة الكربون والعناصر الغذائية الأخرى للبكتيريا. وفي المقابل، تقوم البكتيريا بتثبيت النيتروجين للنبات، حيث تحول النيتروجين الجوي غير القابل للاستخدام إلى أمونيا، وهي صيغة يمكن للنبات استخدامها2,3,4. وبذلك، تعمل العقدة الجذرية كمصنع بيولوجي حيوي لتثبيت النيتروجين، مما يدعم نمو النبات حتى في غياب الأسمدة النيتروجينية الاصطناعية. وتعد عملية تثبيت النيتروجين البيولوجية هذه مهمة اقتصادياً وبيئياً لأنها تسمح للبقوليات بالنمو في غياب الأسمدة الاصطناعية6. علاوة على ذلك، تشكل بعض البقوليات عقداً غير محددة النمو تكون مناطق متميزة تتمايز فيها البكتيريا وتثبت النيتروجين بشكل أكثر كفاءة4. لذا، من المهم تصوير كل من الجزء الخارجي والداخلي للعقدة (حيث تشغل البكتيريا فعلياً الخلايا النباتية داخل العقدة) لدراسة تثبيت النيتروجين البيولوجي بالتفصيل. ومع ذلك، فإنها عضو معتم مليء ببروتين الليجيموغلوبين النباتي أحمر اللون، مما يجعل طرق التصوير التقليدية صعبة.
كانت تقنيات التصوير المستخدمة في الماضي تدميرية؛ حيث استُخدم التقطيع بالشمع البارافيني، والتقطيع بجهاز الفيبراتوم (vibratome)، والتقطيع بالتجميد لإنتاج مقاطع نسيجية، إلا أن هذه الطرق تؤدي إلى تعطيل الحالة الطبيعية للنسيج وتسبب ظهور عيوب تصويرية (artifacts) تزيد من تعقيد عملية إعادة البناء ثلاثية الأبعاد (3D)6,7,8,9,10. وقد تمت بنجاح عملية إعادة البناء من مقاطع نسيجية للعقد المغمورة في البارافين، ولكن هذه الطريقة تعتمد على عينات مجففة وتتطلب أكثر من 200 مقطع فردي8. وفي المقاطع الفردية، يمكن رؤية أجزاء من الجهاز الوعائي، ولكن لا يمكن رؤية كيفية انقسام الحزم والتفافها حول العقدة. كما طُبقت تقنيات متنوعة للوسم والصبغ الفلوري على المقاطع النسيجية قبل الفحص بالمجهر البؤري (confocal microscopy)، إلا أن هذه التقنيات غالباً ما تواجه المشكلات التالية8,9,10: (1) أن نسيج العقد النباتية يتميز بفلورة ذاتية عالية، (2) تتطلب العديد من الطرق إجراء عملية ترويق للنسيج (tissue clearing) قبل التصوير، (3) يمكن أن تؤدي الصبغة الفلورية إلى إتلاف نسيج العقدة، (4) يؤدي تلقيح النباتات ببكتيريا موسومة بالبروتين الفلوري الأخضر (GFP) إلى إحداث إجهاد يؤثر على كل من نمو النبات وتكوين العقد، (5) تكون العقد الطبيعية كبيرة جداً بحيث يصعب تقطيع العينة بأكملها بسهولة5,11.
يُستخدم التصوير المقطعي المحوسب (CT)، الشائع الاستخدام في الإعدادات الطبية، لأغراض تشخيصية وعلاجية على حد سواء12,13. وتُعد التصوير المقطعي الميكروي بالأشعة السينية (MicroCT)، وهي نسخة أصغر من هذا النوع، تقنية تصوير تسمح بالتصور ثلاثي الأبعاد (3D) غير المدمر للعينات الصغيرة. وبينما يقوم التصوير المقطعي المحوسب بتدوير الجهاز حول العينة الكبيرة، يقوم التصوير المقطعي الميكروي بتدوير العينة الصغيرة بالقرب من مصدر الأشعة السينية، مما يسمح بدقة أعلى بكثير. وقد تم تطبيق التصوير المقطعي الميكروي في علم أحياء النمو الحيواني، ولكنه ظهر أيضاً كأداة واعدة في علم أحياء النبات6,10,14,15,16,17,18,19. ومن المهم الإشارة إلى أن التصوير المقطعي الميكروي والتصوير المقطعي بالأشعة السينية القائم على السنكروترون قد استُخدما على نطاق واسع في فيزيولوجيا النبات لاستقصاء الانصمام الخشبي وللتحقق المتبادل من التقديرات القائمة على التصوير مقابل قياسات التدفق الهيدروليكي التقليدية20,21,22. وبما أنه يصور الأعضاء السليمة بمقاييس دون الحاجة إلى تقطيع فيزيائي، فإن التصوير المقطعي الميكروي يحافظ على العلاقات المكانية عبر العقدة بأكملها. وباستخدام عوامل تباين مناسبة، يمكنه تمييز البنى على مستوى الأنسجة مثل الحزم الوعائية ومناطق العدوى، ويمكنه النفاذ إلى ما وراء الحدود التي تفرضها تشتت الضوء في المناهج البصرية التقليدية، وهو أمر قيم بشكل خاص للعقد المعتمة وذات الفلورة الذاتية. كما يمكن إعادة مسح العينات، أو دمجها في سير عمل ارتباطي لاحق بعد معالجة العينات للمجهر الضوئي أو الإلكتروني، أو أرشفتها للتحليل المستقبلي. وعلى الرغم من استخدام بعض الدراسات للتصوير المقطعي الميكروي والتصوير المقطعي بالأشعة السينية القائم على السنكروترون لاستقصاء عقد جذور فول الصويا، إلا أنه لا يوجد سجل مفصل يغطي العملية الكاملة بدءاً من حصاد العقد وتلوينها وصولاً إلى التصوير وإعادة البناء، خاصة بالنسبة للعقد الأصغر مثل عقد البرسيم الحجازي6,14. ويعتمد تباين الأشعة السينية على كثافة الأنسجة، ومعظم أنسجة النبات منخفضة الكثافة وضعيفة التوهين للأشعة السينية. وبدون عامل تباين، لا يمكن تمييز العقد عن الخلفية في جهاز التصوير المقطعي الميكروي المكتبي التقليدي. لذا استخدمنا حمض الفسفو-تنجستيك (PTA)، وهو صبغة غير متخصصة ترتبط بالبروتينات والجزيئات الحيوية الأخرى وقد ثبت أنها تعطي تبايناً عالياً في أنسجة النبات14.
تقدم هذه الدراسة بروتوكولاً مفصلاً وخطوة بخطوة للتصوير المقطعي المحوسب الدقيق (microCT) لعقيدات جذور البقوليات باستخدام البرسيم كنموذج، وذلك عبر نظام مخبري تقليدي يوفر بديلاً أكثر سهولة من المجهر الأشعاعي (XRM) والمنصات القائمة على السينكروترون6,14. يتضمن سير العمل هذا تعليمات محددة لحصاد العقيدات من الجذر، والتثبيت، والصبغ، وتعزيز التباين، والتركيب، والمسح، وإعادة البناء ثلاثي الأبعاد، والتحليل (الشكل 1). وبين هذه الخطوات، نقدم معاملات مفصلة لضمان التثبيت المستقر، والاحتفاظ بالرطوبة، وتحقيق تباين جيد. وفي النهاية، يعد مسار عمل microCT هذا طريقة قابلة للتكرار تسمح بالتصور غير التدميري وعالي الدقة للميزات النسيجية ثلاثية الأبعاد، بما في ذلك التنظيم النسيجي العام، وإشغال البكتيريا للخلايا النباتية، ومناطق تثبيت النيتروجين المتميزة، والحزم الوعائية لعقيدات جذور البرسيم الكاملة في حالتها الطبيعية. ونحن نؤمن بأن هذا البروتوكول سيكون قابلاً للتكيف مع أنواع أخرى من البقوليات، مما يوفر للباحثين طريقة عملية وسليمة لتصور البنية ثلاثية الأبعاد والتنظيم لهذا العضو الجذري البالغ الأهمية.
البروتوكول
1. حصاد العقد وتثبيتها
- استخدم مشرطاً (انظر جدول المواد) لإجراء قطع مستقيم عبر الجذر على كلا جانبي العقدة المستهدفة، مع إبقاء العقدة متصلة بالجذر (الشكل 2).
- انقل من ثمان إلى اثنتي عشرة عقدة إلى قارورة زجاجية سعة 20 مل تحتوي على 10 مل من الإيثانول بتركيز 70% (حجم/حجم) (انظر جدول المواد).
2. صبغ العُقيدات
- قم بتحضير محلول PTA بتركيز 1% (w/v) في إيثانول بتركيز 70% عن طريق إضافة 2 g من مسحوق PTA إلى 200 mL من الإيثانول بتركيز 70% في زجاجة مربعة ذات فوهة واسعة سعة 200 mL (انظر جدول المواد). رج الزجاجة حتى يذوب المسحوق تماماً، ثم تُخزن في درجة حرارة 4 °C. يتم تحضير الصبغة قبل يوم واحد من الاستخدام.
- قم بإزالة الإيثانول بتركيز 70% المستخدم أثناء التثبيت واستبدله بـ 10 mL من محلول PTA بتركيز 1% (انظر جدول المواد).
- ضع القارورة الزجاجية على هزاز مداري في درجة حرارة الغرفة بسرعة 80 rpm لمدة 4 أسابيع. استبدل محلول الصبغ بـ 10 mL من محلول PTA بتركيز 1% طازج أسبوعياً (انظر جدول المواد، الشكل 2).
3. تثبيت العقد
- يتم صهر البارافين باستخدام لوح تسخين عند 100 °C في بيكر زجاجي مفتوح سعة 100 mL (راجع جدول المواد).
- اختر رؤوس ماصات سعة 200 µL لتضمين العينة. يتم سد الرؤوس من الطرف الضيق عن طريق غمسها بشكل سطحي (1–2 mm) في البارافين المصهور (راجع جدول المواد).
- اشطف العينة في 2 mL من الإيثانول بتركيز 70% في طبق ميكروويل سعة 35 mm لمدة 5 min (راجع جدول المواد).
- أضف 0.2 g من الأجاروز منخفض درجة الانصهار في دورق إرلنماير سعة 25 mL وامزجه مع 20 mL من الماء منزوع المعادن للحصول على تركيز 1% (w/v) من الأجاروز منخفض درجة الانصهار. يتم تسخينه على لوح تسخين عند 50 °C ورجه عدة مرات حتى يذوب تماماً. ثم ضع الدورق في حمام مائي مضبوط عند 40 °C (راجع جدول المواد).
- أضف حوالي 25 µL من الأجاروز منخفض درجة الانصهار بتركيز 1% في رؤوس الماصات المسدودة والمقلوبة، وانتظر لمدة 1 min حتى يبرد (راجع جدول المواد).
- التقط عقدة واحدة وانقلها إلى رأس الماصة باستخدام ملقط دقيق لتثبيتها في الأجاروز منخفض درجة الانصهار بتركيز 1%. استخدم رأس تحميل الهلام لتحريك العقدة لتكون أقرب ما يمكن إلى الجانب المسدود بالبارافين من رأس الماصة دون إتلاف العقدة الجذرية (راجع جدول المواد).
- ضع الرؤوس التي تحتوي على العقد الجذرية في حامل للسماح للأجاروز منخفض درجة الانصهار بالتصلب. وبمجرد التصلب، يتم سد الطرف المفتوح من رؤوس الماصات باستخدام Parafilm للحفاظ على الرطوبة (راجع جدول المواد). تُخزن العينة في الثلاجة عند 4 °C، ويتم فحص العينات المضمنة خلال أسبوع.
4. التصوير بالمقطعي المحوسب الدقيق (MicroCT)
- ثبِّت رؤوس الماصات مقلوبةً على حامل عينات بحجم مناسب للسماح بأقرب وضعية ممكنة من مصدر الأشعة السينية وضمان تمركز العينة بدقة (انظر جدول المواد).
- افتح برنامج التصوير المقطعي المحوسب (CT). ثبّت العينة بإحكام في الحامل على منصة الدوران بجهاز التصوير المقطعي المحوسب الدقيق (microCT) (انظر جدول المواد، الشكل 3، الشكل التكميلي 1).
- قم بتشغيل عرض الكاميرا ومصدر الأشعة السينية، ثم قم بتشغيل شاشة عرض الأشعة السينية المستمرة (الشكل التكميلي 1).
- اضبط ارتفاع العينة رأسيًا لجعل المنطقة المستهدفة في مركز شاشة الأشعة السينية المستمرة. دون هذا الارتفاع لاستخدامه لاحقًا في الخطوة 4.10 (الشكل التكميلي 1).
- مع تجميع البكسلات (binning) عند 512 × 512، واضبط حجم البكسل (انظر الجدول التكميلي 1بحيث تملأ العينة معظم مجال الرؤية في العرض المستمر للأشعة السينية، مع ترك مساحة فارغة على كل جانب (الشكل التكميلي 1).
- قم بتمركز العينة في شاشة عرض الأشعة السينية المستمرة عن طريق تدوير كل من 45° وضبطها في المركز (الشكل التكميلي 1).
- غيّر التجميع إلى 2048 × 2048 (انظر الجدول التكميلي 1, الشكل التكميلي 1).
- اختر "بدون مرشح" (no filter) واضبط الجهد على 50 كيلو فولت والتيار على 40 µA في الـ أنماط المسح القائمة (انظر الجدول التكميلي 1, الشكل التكميلي 1).
- قم بإجراء تصحيح الحقل المسطح (flat field correction) عن طريق خفض العينة إلى 68 مم بحيث لا تكون ضمن مجال رؤية شاشة عرض الأشعة السينية المستمرة. أوقف تشغيل تصحيح المجال المسطح واضبط الـ وقت التعرض وبذلك يكون متوسط نفاذية الأشعة السينية 55%. دورُه تصحيح المجال المسطح على (انظر الجدول التكميلي ١, الشكل التكميلي 1).
- أعد العينة إلى الارتفاع الذي تم تحديده في الخطوة 4.4 (الشكل التكميلي 1).
- في خيارات المسح، وحدد اسم الملف وموقع المجلد (الشكل التكميلي 1).
- اضبط خطوة الدوران على 0.200°اضبط الـ متوسط الإطارات إلى 3 و الـ الحركة العشوائية إلى 30اختر 360° المسح (انظر الجدول التكميلي 1, الشكل التكميلي 1).
- عند الرغبة، قم بضبط العرض الجزئي لاستبعاد المساحات الفارغة المفرطة وتقليل حجم البيانات (الشكل التوضيحي التكميلي 1).
- انقر مسح لبدء عملية المسح (الشكل التكميلي 1).
5. إعادة بناء الصورة
- افتح برنامج إعادة بناء الصور وقم بتحميل جميع المساقط ثنائية الأبعاد (2D) من المسح (راجع جدول المواد، الشكل 4).
- انقر فوق Preview لمعاينة نتائج إعادة البناء عند موقع الخط الأخضر (الشكل التكميلي 2).
- اضبط المدرج التكراري في علامة التبويب Output. قم بقص المنطقة المسطحة على اليمين وأبقِ القيمة عند 0 أو أقل قليلاً من 0 على اليسار (الشكل التكميلي 2).
- في علامة التبويب Start، انقر فوق Fine Tuning لإجراء المحاذاة اللاحقة. ابدأ بضبط خطوة Parameter على واحد وNumber من التجارب على خمسة. انقر فوق Start ثم OK. عندما تظهر النتائج في علامة التبويب Output، انقر فوق نافذة prv وتنقل عبر النتائج باستخدام السهم لاختيار أفضل محاذاة. أبقِ البرنامج على أفضل صورة (الشكل التكميلي 2).
- قم بتنشيط منطقة الاهتمام (ROI) في علامة التبويب Output من خلال النقر فوق المربع المجاور لـ Use ROI. اختر circle كشكل لمنطقة الاهتمام. اضبط حجم منطقة الاهتمام ليتناسب مع حجم العينة عبر حجم البيانات من خلال العودة إلى علامة التبويب Start وتحريك الخط الأخضر لمعاينة مواقع مختلفة. اترك بعض المساحة الفارغة حول العينة (الشكل التكميلي 2).
- انقر للعودة إلى علامة التبويب Start. حرك الخطوط الحمراء في الأعلى والأسفل لقص المناطق غير المطلوبة في بيانات إعادة البناء. تحقق مما إذا كانت هناك بيانات مهمة قد استُبعدت عن طريق تحريك الخط الأخضر بالقرب من الخطوط الحمراء ومعاينة عمليات إعادة البناء في علامة التبويب Output (الشكل التكميلي 2).
- في علامة التبويب Output، احفظ عملية إعادة البناء كصور TIFF (16-bit) في الموقع المطلوب (الشكل التكميلي 2).
- ارجع إلى علامة التبويب Start وانقر فوق Start (الشكل التكميلي 2).
6. التصوير ثلاثي الأبعاد
- افتح برنامج Dragonfly (انظر جدول المواد).
ملاحظة: لمزيد من المعلومات حول Dragonfly وإمكاناته، يرجى الرجوع إلى https://dragonfly.comet.tech/ - استورد صور TIFF المعاد بناؤها.
- حدد جميع الصور وتأكد من أن المسافات بين الصور متساوية مع الـ حجم بكسل الصورة المقيّس في ملف نص المسح (الشكل التكميلي 3).
- اضبط تسوية النافذة (window leveling) للحصول على عرض ثلاثي الأبعاد بتباين جيد (الشكل التكميلي 3).
- قم بالتمرير عبر مستويات المقاطع ثنائية الأبعاد المختلفة (XY، مستعرض؛ XZ، إكليلي؛ YZ، سهمي) (الشكل الإضافي 3).
- انقر بزر الماوس الأيمن فوق الصورة وقم بتصدير لقطة شاشة للمشهد لحفظ مناظر المقاطع حسب الحاجة (الشكل 4).
النتائج
قمنا بحصاد عقدتين جذريتين من كل نبات من بين ثلاثة نباتات M. sativa. استُخدمت عقدتان لإجراء مقارنات مدة الصبغ، بينما تم تصوير أربع عقد بعد إتمام عملية الصبغ لمدة 28 يوماً باستخدام 1% PTA في 70% ethanol لتعزيز التباين. ومن خلال استخدام 1% low-melting-point agarose كوسط تثبيت داخل رؤوس الماصات، حققنا بيئة تثبيت ذات كثافة أشعة سينية منخفضة تحيط بالعينة. وقد نجح محلول الصبغ في زيادة تباين الأنسجة النباتية (الشكل 5A,B، الشكل التكميلي 4). كما أمكن فصل الإشارة الصادرة عن العينة بسهولة عن الخلفية ورأس الماصة بواسطة المدرج التكراري للبيانات، مما سمح بتصور ثلاثي الأبعاد دون عوائق للهيكل الخارجي والداخلي للعقدة الجذرية بأكملها (الشكل 5A,B).
تظهر البشرة الخارجية، ولكنها تبدي تباينًا أقل مقارنةً بالأنسجة الأخرى (الشكل 5C–Eومن ناحية أخرى، تبدو الحزم الوعائية واضحة ومتصلة جيداً من أسفل العينة إلى أعلاها (الشكل 5أ,B). وفي المقاطع العرضية، يمكننا رؤية عدد هذه الحزم وانقسامها بوضوح (الشكل 5جعلاوة على ذلك، تظهر الأنسجة الداخلية تباينًا جيدًا، مما يسمح بتحديد القشرة والفجوات النباتية (الشكل 5ج–Eكما يجعل التباين العالي من السهل تمييز الخلايا المصابة وغير المصابة (الشكل 5ج–Eتكشف المقاطع الإكليلية والسهمية عن توزيع مناطق الميرستيم (المرستيمية)، والعدوى، والتمايز (الشكل 5D). الفيديو التكميلي 1 يظهر 360° منظر لعقدة أعيد بناؤها ثلاثية الأبعاد.
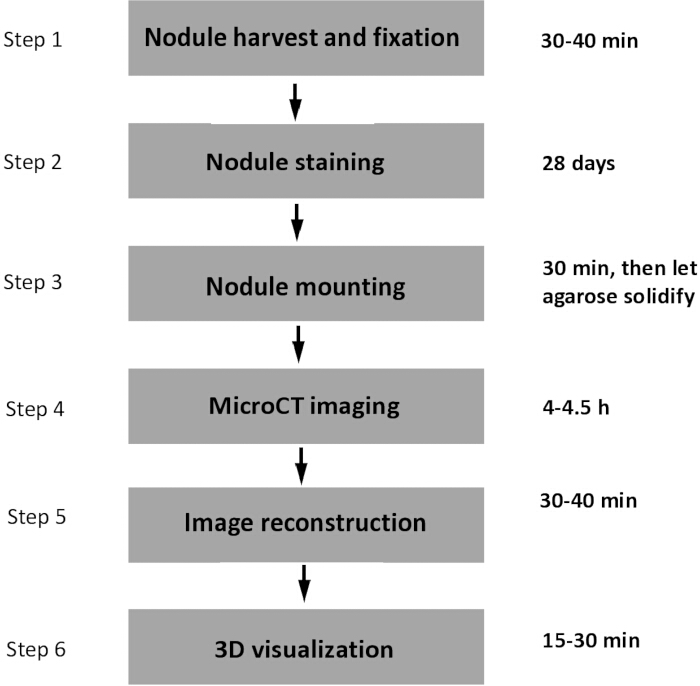
الشكل 1: سير عمل البروتوكول. نظرة عامة على سير العمل الخاص باستخدام التصوير المقطعي المحوسب الدقيق (microCT) لتصوير العقد الجذرية للبقوليات والتوقيت المطلوب لكل خطوة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
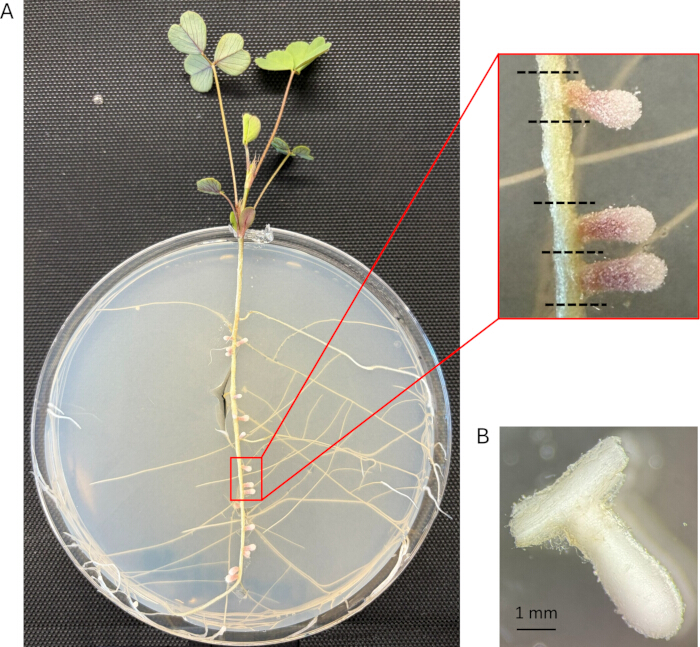
الشكل 2: عقد جذور M. sativa لهذا البروتوكول. (A) نبات M. sativa بعد 28 يوماً من التلقيح ببكتيريا S. meliloti (28 dpi). تمثل الخطوط المنقطة السوداء خطوط القطع المقترحة لاستئصال العقد الموضحة في الصورة. تم استئصال عقدتين لكل نبات من ثلاثة نباتات، وتم مسح أربع عينات. (B) عقدة M. sativa بعد 28 يوماً من التلقيح (28 dpi) بعد 4 أسابيع من صبغ PTA. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
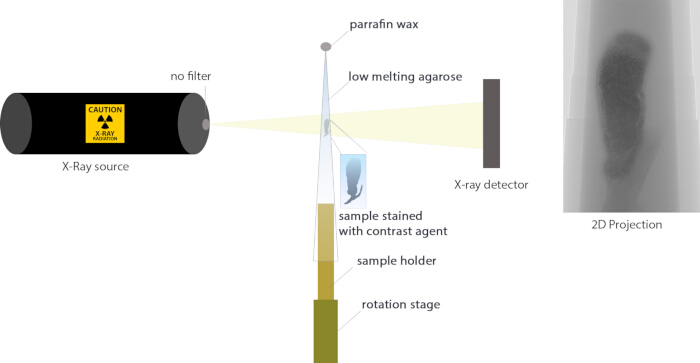
الشكل 3: نظرة عامة على إعداد العينة للتصوير المقطعي المحوسب الدقيق (microCT). يتم تثبيت العقدة الجذرية المصبوغة بعامل تباين في أغاروز منخفض درجة الانصهار داخل رأس ماصة دقيقة. يتم إغلاق أحد طرفي رأس الماصة الدقيقة بشمع البارافين وتثبيته على منصة الدوران داخل جهاز microCT. يقع مصدر الأشعة السينية (بدون مرشح) على أحد جانبي الجهاز، وتمر الأشعة عبر العينة لتصل إلى كاشف الأشعة السينية على الجانب الآخر. ينتج عن المسح مسقط ثنائي الأبعاد بناءً على كثافة الأنسجة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
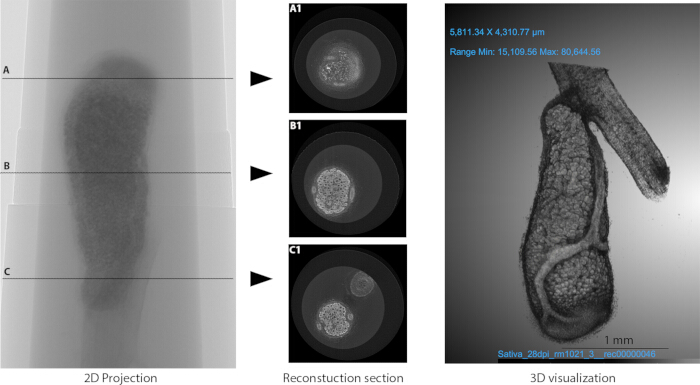
الشكل 4: مثال على إعادة بناء الصورة والتصور ثلاثي الأبعاد. (اليسار) مسقط ثنائي الأبعاد. (الوسط) مقطع إعادة البناء. تُظهر الصور A1 و B1 و C1 المقاطع المستعرضة المعاد بناؤها في المواقع A و B و C من مسقط microCT ثنائي الأبعاد. (اليمين) تصور ثلاثي الأبعاد للعقدة الجذرية تم إنتاجه من الصور المعاد بناؤها. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
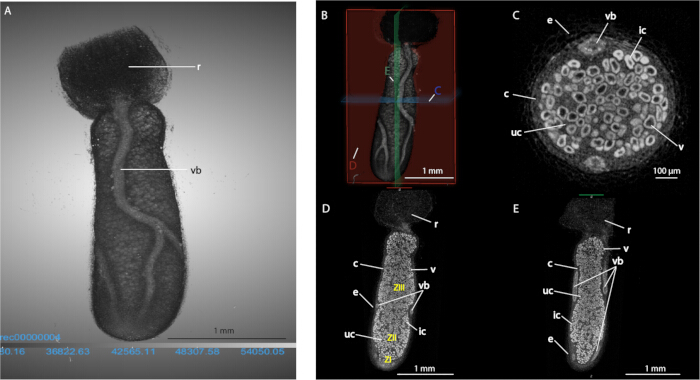
الشكل 5صور تمثيلية مشروحة. (A) مشروح تصوير ثلاثي الأبعاد لـ *M. sativa* عقدة جذرية.Bخطوط تحديد باللون الأحمر والأزرق والأخضر على صورة ثلاثية الأبعاد توضح المقطع العرضي (كربون)، الإكليلي (د)، والسهمي (هـ) المستويات، على التوالي. المقاطع المستعرضة الموضحة (ج)، الإكليلي (د)، والسهمي (هـأقسام من *M. sativa* عقيدة جذرية. الاختصارات: c – القشرة؛ e – البشرة؛ ic – خلية مصابة؛ r – الجذر؛ uc – خلية غير مصابة؛ v – فجوة؛ vb – حزمة وعائية؛ ZI – المنطقة الأولى (المرستيمية)؛ ZII – المنطقة الثانية (الإصابة)؛ ZIII – المنطقة الثالثة (التمايز). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1. لقطات شاشة للبرنامج المستخدم في التصوير المقطعي المحوسب الدقيق (microCT). (A1) فتح وإغلاق باب المنصة. (A2) تشغيل عرض الكاميرا. (A3) تشغيل مصدر الأشعة السينية. (A4) تشغيل عرض الأشعة السينية المستمر. (A5) ضبط ارتفاع العينة. (A6) ضبط حجم البكسل. (A7) تدوير العينة. (A8) تغيير التجميع (binning). (A9) تغيير المرشح. (A10) خيارات الوصول إلى أوضاع المسح. (A11) ضبط جهد وتيار مصدر الأشعة السينية. (A12) نقر مزدوج لإيقاف تصحيح المجال المسطح. (A13) خيارات المسح. (B1) إيقاف تصحيح المجال المسطح. (B2) خيارات الوصول إلى أوضاع المسح. (B3) متوسط نفاذية الأشعة السينية. (B4) ضبط وقت التعرض. (B5) تحديث المجالات المسطحة. (C1) تسمية الملف واختيار مكان حفظ البيانات. (C2) ضبط خطوة التدوير، ومتوسط الإطارات، والحركة العشوائية، والمسح بزاوية 360 درجة. (C3) ضبط العرض الجزئي. (C4) بدء المسح.يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 2. لقطات شاشة للبرنامج المستخدم في إعادة بناء الصورة. (A1) اختر مكان معاينة العينة. (A2) معاينة العينة. (A3) الضبط الدقيق للمعاملات. (A4) تعيين عدد المحاولات وخطوة المعامل لعملية ما بعد المحاذاة. (A5-6) الجزء العلوي والسفلي من منطقة إعادة البناء. (A7) بدء إعادة البناء. (B1) ضبط التباين. (B2) عرض والنقر عبر نتائج ما بعد المحاذاة. (B3) إنشاء منطقة اهتمام (ROI) دائرية. (B4) اختر صيغة الملف ومكان حفظ البيانات.يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 3. لقطات شاشة للبرمجيات الخاصة بالتصوير ثلاثي الأبعاد. (أ) معلومات تباعد الصور. (ب) أدوات التحديد والتدوير والتكبير (في الأعلى). موازنة النافذة لضبط التباين (في الأسفل). (ج) شريط مقياس العرض (في الأعلى). تغيير لون الخلفية (في الأسفل). يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 4. إعادة بناء التصوير المقطعي المحوسب الدقيق (MicroCT) بعد صبغ PTA لمدة 14 و17 و28 يوماً. (A) يُظهر المقطع المعاد بناؤه من نبات M. sativa بعد صبغ PTA لمدة 14 يوماً وجود ضجيج في الطبقة الخارجية (n = 1). (B) يُظهر المقطع المعاد بناؤه من نبات M. sativa بعد صبغ PTA لمدة 17 يوماً تبايناً أعلى في الطبقة الخارجية ولكن وضوحاً أقل في الداخل مقارنة بـ (A) (n = 1). (C) يُظهر المقطع المعاد بناؤه من نبات M. sativa بعد صبغ PTA لمدة 28 يوماً تبايناً أعلى في كل من الطبقات الخارجية والداخلية مقارنة بـ (A) و (B) (n = 4).يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 1: معاملات التصوير بالمقطعي المحوسب الدقيق (microCT).يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي 1: فيديو ثلاثي الأبعاد للعقيدات.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
فيما يلي بعض التوصيات بشأن تحضير العينات وصبغها. أثناء تحضير العينات للتصوير المقطعي المحوسب الدقيق (microCT)، يعد الاستئصال الدقيق للعقيدات أمراً ضرورياً للحفاظ على السلامة الهيكلية. ونوصي بالاحتفاظ بجزء صغير من الجذر على كلا جانبي نقطة اتصال العقيدة للحفاظ على السياق المكاني وتقليل تلف الأنسجة. ويعد استخدام عامل تباين أمراً بالغ الأهمية لتعزيز وهن الأشعة السينية وتصور السمات التشريحية الداخلية14. وقد أظهرت دراسة سابقة استخدمت الصبغ بحمض الفوسفوتنجستيك (PTA) أن هناك حاجة لفترة صبغ لا تقل عن 14 يوماً لتحقيق تباين كافٍ عبر الأنواع النباتية وأنواع الأنسجة المختلفة، دون وجود دليل على الصبغ المفرط14. في تلك الدراسة، تم صبغ عقيدات جذر فول الصويا المستحثة بواسطة Bradyrhizobium (والمثبتة عند 14 يوماً بعد العدوى dpi) لمدة 35 يوماً14. وباستخدام هذا النطاق (14-35 يوماً) كمرجع، أجرينا تجارب صبغ أولية على عينات العقيدات الخاصة بنا في عدة نقاط زمنية (14 و17 و28 يوماً) وقارنا تباين الصور الناتج. تم اختيار فترة صبغ مدتها 28 يوماً لهذا البروتوكول، لأنها وفرت تبايناً أفضل، وحدوداً خلوية أوضح، وصبغاً أكثر تجانساً مقارنة بالنقاط الزمنية الأقصر (الشكل التكميلي 4). ونشير إلى أن عمليات إعادة البناء لمدة 14 و17 يوماً مأخوذة من عقيدة واحدة بدلاً من دراسة مكررة منهجية، بينما تشمل حالة الـ 28 يوماً جميع العقيدات الأربع التي تم مسحها ضوئياً، ويجب تعديل مدة الصبغ بناءً على الدقة المطلوبة للدراسة. كما أن فترة الصبغ لمدة 28 يوماً ليست إطاراً زمنياً قصيراً. وكما اقترحت دراسات سابقة، قد يساعد الصبغ بمساعدة الميكروويف في تسريع تغلغل حمض الفوسفوتنجستيك (PTA) وبالتالي تقصير مدة الصبغ المطلوبة14. كما تُستخدم العوامل القائمة على اليود، مثل محلول لوغول (Lugol’s solution)، لتعزيز التباين في الأنسجة النباتية23,24. لقد اخترنا حمض الفوسفوتنجستيك (PTA) بناءً على أدائه المثبت في أنسجة العقيدات ولم نقم بمقارنة عوامل الصبغ، حيث كان الهدف الرئيسي من هذه الدراسة هو وضع بروتوكول واحد قابل للتكرار14. وينبغي أن تختبر الدراسات المستقبلية أصباغاً أخرى عبر مختلف الأنواع النباتية وأنواع الأنسجة.
يعد التضمين الصحيح أمراً على قدر كبير من الأهمية أيضاً؛ حيث يجب أن تظل العينة مغطاة بالكامل بـ agarose منخفض درجة الانصهار لمنع الجفاف والحفاظ على شكلها الطبيعي. وبعد عملية التضمين، ينبغي تخزين العينات طوال الليل عند 4 °C لضمان تصلب الـ agarose والحفاظ على الاستقرار أثناء المسح. كما يجب تثبيت العينة المثبتة بإحكام على منصة المسح لمنع حدوث انزياح أو ظهور تشوهات ناتجة عن الاهتزاز أثناء عملية الحصول على البيانات.
تتيح تقنية MicroCT التصوير ثلاثي الأبعاد غير المدمر لأنسجة العقدة بأكملها بدقة أقل تفصيلاً من المجهر الضوئي والمجهر الإلكتروني. وبشكل عام، توفر كل من تقنيتي XRM والتصوير المقطعي بالأشعة السينية القائم على السنكروترون صوراً ذات جودة ودقة أعلى من تقنية microCT التقليدية. كما يتيح التصوير المقطعي بالأشعة السينية القائم على السنكروترون مسح العينات الطازجة غير المصبوغة مباشرة، حيث يسمح التدفق الفوتوني العالي وتماسك الحزمة بالاستحواذ السريع والحصول على تباين كافٍ دون الحاجة إلى عوامل تعزيز التباين6. وتعتبر المقارنة المباشرة مع دراسة Duncan et al. (2022)14 ودراسة Nakhforoosh et al. (2024)6 محدودة بسبب الاختلافات في تصميم الدراسة: الأنواع (فول الصويا مقابل Medicago sativa)، ونوع العقدة (محددة مقابل غير محددة)، وطريقة التصوير (XRM والتصوير المقطعي بالأشعة السينية القائم على السنكروترون مقابل microCT التقليدي). ومع ذلك، فإن الحجم الاسمي للبكسل في إعادة بناء العقد لدينا يبلغ حوالي 1.75 µm، وهو أدق من مسح العقد في دراسة Duncan et al. (2022)14 (2.2 µm، الشكل 4A)، ومع ذلك لا تزال عمليات إعادة البناء لديهم تظهر وضوحاً أكبر من عملياتنا. ويرجح أن يعكس ذلك أن الدقة الفعلية تعتمد على ما هو أكثر من مجرد الحجم الاسمي للبكسل؛ حيث تساهم جميعاً التكبيرات البصرية للعدسات الشيئية في XRM، وحساسية الكاشف، واستقرار المصدر، وجودة الكاميرا، وطرق إعادة البناء. وبينما يمكن تمييز المعالم الكبيرة منخفضة الكثافة بسهولة مثل الفجوات، كما هو موضح هنا، لا يمكن تمييز إشغال الخلايا الفردية بالبكتيريدات أو العضيات الأصغر أو الأقل كثافة، ولا يمكن رصد العمليات البيولوجية الديناميكية في الوقت الفعلي. كما أن عوامل التباين القائمة على PTA واليود غير متخصصة ولا يمكنها تحديد الهوية الجزيئية. لذا، ستظل الأسئلة المتعلقة بالتراكيب تحت الخلوية تتطلب المجهر الفلوري أو المجهر الإلكتروني. وتعد طرق التصوير هذه متكاملة، حيث أن تقنية microCT مناسبة جداً لمورفولوجيا العضو بأكمله وبنية الأنسجة ثلاثية الأبعاد، مما يوفر سياقاً للمجهر الضوئي والإلكتروني اللذين يتناولان التفاصيل الهيكلية والجزيئية الأكثر دقة.
لقد تمكنا من تكرار سير العمل هذا بنجاح باستخدام عقد في نقاط زمنية ومراحل نمو مماثلة من نبات M. sativa الملقح بسلالات أخرى من S. meliloti، ونباتي M. truncatula وTrigonella foenum-graecum الملقحين بعدة سلالات مختلفة من S. meliloti (بيانات غير منشورة). لم نختبر عقداً في مراحل نمو مختلفة، حيث كان هدفنا هو توصيف وتقديم بروتوكول قابل للتكرار للعقد الناضجة المثبتة للنيتروجين. ومع ذلك، من المفترض أن يكون سير العمل قابلاً للتطبيق على عقد في مراحل نمو متنوعة، حيث إن القيد الأكثر أهمية هو حجم العقدة. كانت العقد التي تم مسحها بطول 2.5 mm تقريباً (الجدول التكميلي 1). وبالنسبة لجهاز microCT المستخدم في هذه الدراسة، فإن أصغر طول نوصي به هو 1 mm. سيتأثر الحجم الذي يمكن تصويره بالآلة المستخدمة، نظراً لاختلاف مستويات التكبير.
تشير الأدلة الحديثة إلى أن نسبة الإشغال داخل العقدة تمثل معياراً هاماً يرتبط ارتباطاً مباشراً بكفاءة تثبيت النيتروجين. وقد ثبت أن العقد التي تحتوي على نسبة أكبر من الخلايا المصابة تقوم بتثبيت النيتروجين بشكل أفضل من تلك التي يشغل البكتيريا عدداً أقل من خلاياها25. بالإضافة إلى ذلك، تعتمد صحة العقدة على مدى تطور الأوعية الدموية، حيث يشير وجود أوعية تالفة أو محدودة إلى عقد معيبة وتدهور في صحة النبات26. ونظراً للقدرة على تصور الإشغال والبنية الوعائية، فإن التصوير المقطعي المحوسب الدقيق (microCT) يسد فجوة هامة في مجال تثبيت النيتروجين. يتيح سير العمل هذا إمكانية الوصول الروتيني إلى التصوير غير المدمر للبنى الداخلية والخارجية لعقد الجذور، وتعد هذه البنى محددات مباشرة لكفاءة التثبيت التي تدفع إمدادات النيتروجين التكافلية للمحاصيل.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للإفصاح عنه.
شكر وتقدير
نود أن نشكر ستيفاني سيج على مساعدتها في تحضير النباتات. وساعد تشيا تشاو في عملية تضمين العينات. ونحن ممتنون لمادي ميتشل على المناقشات الأولية للمشروع. كما نود أن نشكر توم كليست وكيكسي يي على مشورتهما في تفسير البيانات. ونشكر أيضاً كيث دانكان (مركز دونالد دانفورث لعلوم النبات) على مشورته بشأن البروتوكول. تم تمويل هذا المشروع من قبل معهد ستويرز للأبحاث الطبية.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| قنينة زجاجية 20 mL | Sigma-Aldrich | Z190527 | تستخدم لحفظ العقد من أجل التثبيت والصبغ. |
| رؤوس ماصة 200 µL | Fisherbrand | 02-717-144 | تستخدم لحفظ العقد من أجل التصوير. |
| طبق آبار دقيقة 35 mm | Fisher Scientific | 507532924 | يستخدم لغسل العقد بعد الصبغ. |
| برنامج Dragonfly | Comet Technologies Canada Inc. | V2022.2 | يستخدم لتصور ومعالجة عمليات إعادة البناء ثنائية الأبعاد في عرض ثلاثي الأبعاد. |
| إيثانول | Decon Labs | V1001 | يستخدم لتثبيت وغسل العقد. |
| ملقط دقيق | Dumont | AA-Inox-E | يستخدم لضبط وضع العقد في رأس الماصة. |
| رأس تحميل الهلام | Corning (Costar) | 4853 | يستخدم لمعالجة العقدة داخل الأجاروز في رأس الماصة. |
| لوح تسخين | Mirak | SP72725 | يستخدم لصهر البارافين وإذابة الأجاروز منخفض الانصهار. |
| أجاروز منخفض الانصهار (LowMelt agarose) | GeneMate | 490001-602 | يستخدم لتضمين العقد الجذرية للحفاظ على التوجيه والرطوبة. |
| جهاز MicroCT | Bruker | Bruker SkyScan 1272 | يستخدم لمسح العقدة. |
| برنامج NRecon | Bruker | V2.2.0.6 | يستخدم لإعادة بناء المساقط ثنائية الأبعاد. |
| هزاز مداري | VWR | 77591-858 | يستخدم لرج العقدة الجذرية لتسريع تغلغل الصبغة. |
| بارافين | McCormick Scientific | 39503002 | يستخدم لسد الطرف الضيق من رأس الماصة. |
| بارافيلم (Parafilm) | Alkali Scientific | PM996 | يستخدم لسد رؤوس الماصات لمنع جفاف العينة. |
| حمض الفسفوتونجستيك | Electron Microscopy Science (EMS) | 19500 | يستخدم لصبغ العقد. |
| حامل عينة - طول 3.4 cm قطر 0.63 mm | Bruker | Set from Bruker with machine | يستخدم لحمل رأس الماصة والعينة أثناء التصوير. |
| مشرط | Fisher Scientific | S07890 | يستخدم لجمع العقد الجذرية. |
| برنامج Skyscan | Bruker | v1.5.1.0 | يستخدم للتحكم في جهاز MicroCT. |
| حمام مائي | Boekel Grant | 640013001 | يستخدم للحفاظ على الأجاروز في الحالة السائلة أثناء تضمين العقد. |
المراجع
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً