يصف هذا البروتوكول الإجراءات الخطوية لتقييم مقاومة الكائن الحي بأكمله للإجهاد الحراري، والإجهاد التأكسدي، وإجهاد الشبكة الإندوبلازمية (ER stress)، والإجهاد الميتوكوندري. كما يوفر طرقاً لتقييم ما إذا كانت الخلايا العصبية تلعب دوراً في مقاومة الإجهاد.
مقالة منهجية
طرق قياس مقاومة الضغوط المتعددة في Caenorhabditis elegans
في هذه المقالة
ملخص
الملخص
تتعرض الكائنات الحية لمجموعة متنوعة من الضغوط البيئية والخلوية طوال حياتها. وترتبط القدرة على مقاومة الضغوط المختلفة ارتباطاً وثيقاً بمدة الصحة والعمر الافتراضي للكائنات. وتعد ديدان Caenorhabditis elegans (C. elegans) كائناً نموذجياً مثالياً لقياس مقاومة الإجهاد لتسهيل البحث في الآليات الجزيئية المحفوظة التي تكمن وراء هذه المقاومة. كما تمتلك C. elegans جهازاً عصبياً مبسطاً يعد أساسياً لفهم الأساس العصبي لمقاومة الإجهاد. نقدم هنا طرق قياس مقاومة الإجهاد في C. elegans تحت أربعة ظروف إجهاد مختلفة: الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد الميتوكوندري، والإجهاد التأكسدي. يتم وضع مجموعات من الديدان على أطباق أغار صلبة، وتعريضها لدرجات حرارة مجهدة في حالة الإجهاد الحراري، أو تعريضها لأغار يحتوي على جرعات مختلفة من المركبات التي تحفز إجهاد الشبكة الإندوبلازمية أو الإجهاد الميتوكوندري أو الإجهاد التأكسدي. لقد قمنا بتحديد جرعات متزايدة من كل نوع من أنواع الإجهاد وعايرنا الجرعة المثالية لتحديد الاختلافات في مقاومة الإجهاد في سلالة تم فيها استئصال عصبونات RIC مقارنة بالسلالة البرية، على سبيل المثال. وتحت ظروف الإجهاد، يتم مراقبة بقاء C. elegans على قيد الحياة بشكل ساعي أو يومي، ثم يتم رسم منحنيات البقاء ومقارنتها لتحديد القدرات المختلفة لمقاومة الإجهاد في سلالات C. elegans المختلفة. يوفر هذا نهجاً قابلاً للتكرار لتقييم المقاومة لضغوط متعددة عبر نطاق من الجرعات والمقاييس الزمنية في سلالات C. elegans البرية أو الطافرة أو السلالات التي خضعت لتعديلات عصبية، كما يساعد في الكشف عن الآليات الجزيئية والعصبية التي تكمن وراء الضغوط المتعددة.
المقدمة
تتعرض الكائنات الحية لمجموعة متنوعة من الضغوط البيئية طوال حياتها. وتسبب معظم هذه المجهدات، بما في ذلك الحرارة، ونقص الأكسجة، والإشعاع، والإجهاد التأكسدي، والإجهاد الاسموزي، والإجهاد الممرض، خللاً وظيفياً خلوياً واختلالات في التوازن الداخلي تؤدي بدورها إلى تحفيز استجابات الإجهاد داخل الخلايا. وتطور الكائنات الحية مسارات استجابة للإجهاد محفوظة للغاية للتكيف مع التحديات والمجهدات البيئية الديناميكية. وتشمل مسارات الاستجابة للإجهاد المحفوظة هذه استجابات الصدمة الحرارية (HSR)1، واستجابات البروتين غير المطوي (UPR) في الشبكة الإندوبلازمية (ER) والميتوكوندريا2، والاستجابة للإجهاد التأكسدي3. وتعمل المنظمات الرئيسية لمسارات الاستجابة للإجهاد المختلفة، والتي عادة ما تكون عوامل نسخ، على تحفيز تعبير الجينات المستجيبة لاستعادة التوازن البروتيني وتعزيز بقاء الخلايا4. وتشمل هذه الاستجابات تخليق المرافقات البروتينية (chaperones) التي تعيد طي البروتينات ذات الطي الخاطئ، وإزالة البروتينات التالفة عن طريق تحلل البروتين4. ويؤدي الفشل في تنشيط استجابات الإجهاد إلى تراكم البروتينات التالفة في السيتوبلازم أو العضيات، مما يؤدي إلى خلل وظيفي في الخلايا والأنسجة. وقد ارتبط اختلال استجابة الإجهاد الخلوي بمجموعة متنوعة من الأمراض المزمنة، التي تتراوح من التنكس العصبي إلى المتلازمة الأيضية5,6. وفي المقابل، يؤدي التنشيط المناسب لمسارات الاستجابة للإجهاد إلى تحسين مدى الصحة وإطالة العمر الافتراضي بشكل ملحوظ7. لذلك، من المهم استقصاء الآليات الجزيئية لمقاومة الإجهاد لتسخير استجابة الإجهاد الوقائية لتحسين الصحة. ومن ثم، يصبح من الضروري وضع طرق وتقنيات قابلة للتكرار للتقدير الكمي الدقيق لمقاومة الإجهاد في الحيوانات الحية.
أظهرت الاكتشافات في السنوات الخمس عشرة الماضية دور الإشارات العصبية في تحسين مقاومة الإجهاد لدى أنواع متعددة8. وقد أشارت النتائج الأولية إلى أن استجابة الصدمة الحرارية (HSR) واستجابة البروتين غير المطوي في الشبكة الإندوبلازمية (ER UPR) في الخلايا العصبية كافيتان لتنشيط استجابة الإجهاد في الأنسجة غير العصبية، مما أدى إلى ترسيخ مفهوم التنظيم غير المستقل خلويًا لمقاومة الإجهاد8,9,10. ومنذ هذا الاكتشاف الأولي، أظهرت أدلة متزايدة أن مسارات متعددة لمقاومة الإجهاد تستجيب للإشارات البيئية وتعزز مقاومة الإجهاد من خلال الإشارات العصبية. وبشكل محدد، فإن كلًا من HSR10,11، وER UPR12,13، واستجابة البروتين غير المطوي في الميتوكوندريا (UPRmt)14,15، واستجابة الإجهاد التأكسدي3، تعزز مقاومة الإجهاد بشكل غير مستقل خلويًا عبر الخلايا العصبية. وتعد آلية التنظيم غير المستقل خلويًا لمقاومة الإجهاد محفوظة عبر الكائنات الحية بما في ذلك ذبابة الفاكهة D. melanogaster16,17,18,19 والفئران20,21.
لتسهيل الأبحاث التي تدرس دور الخلايا العصبية في مقاومة الإجهاد تحت تأثير عوامل إجهاد متعددة، نقدم هنا بروتوكولاً منهجياً لاختبار المقاومة تحت أربعة عوامل إجهاد تنظمها الخلايا العصبية: الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية، والإجهاد الميتوكوندري، والإجهاد التأكسدي. وقد استُخدمت ديدان C. elegans، وهي كائن نموذجي سهل التعامل معه، لقياس مقاومة الإجهاد تجاه هذه العوامل الأربعة. إن استخدام C. elegans في اختبارات مقاومة الإجهاد لا يسمح بدراسة تنشيط استجابات الإجهاد على المستوى الخلوي فحسب، بل على مستوى الكائن الحي أيضاً.
تُعد مسارات الاستجابة للإجهاد التي يتم تنشيطها بواسطة الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER stress)، والإجهاد الميتوكوندري، والإجهاد التأكسدي، مسارات محفوظة ومهمة وظيفياً عبر الكائنات الحية بما في ذلك البشر22,23,24,25. يؤدي الإجهاد الحراري إلى سوء طي البروتينات وتجمعها، كما ينشط استجابة الصدمة الحرارية، وهي عملية حيوية للحفاظ على التوازن البروتيني26. تبلغ درجة الحرارة البيئية الفسيولوجية لـ C. elegans 20 °C، وتؤدي درجات الحرارة الأعلى من 25 °C إلى تحفيز الإجهاد الحراري في C. elegans27. نقوم بتحفيز الإجهاد الحراري تحت ثلاث درجات حرارة مرتفعة وتحدّية وهي 30 °C و 35 °C و 37 °C.
تعد الشبكة الإندوبلازمية (ER) الموقع الرئيسي لتخليق البروتينات وطيّها28. ويؤدي تراكم البروتينات غير المطيّة أو المطوية بشكل خاطئ داخل تجويف الشبكة الإندوبلازمية إلى تنشيط استجابات البروتين غير المطيّ لاستعادة التوازن البروتيني (proteostasis)29. يمكن تحفيز إجهاد الشبكة الإندوبلازمية بواسطة مادة كيميائية، وهي التونيكاميسين (tunicamycin)، التي تمنع عملية الارتباط السكري من النوع N (N-linked glycosylation) وتسبب تراكم البروتينات المطوية بشكل خاطئ في تجويف الشبكة الإندوبلازمية30. وتشير المقاومة المتزايدة لإجهاد سوء طي البروتين في تجويف الشبكة الإندوبلازمية إلى زيادة معدل البقاء12. نقوم بتعريض الديدان لجرعات مختلفة من التونيكاميسين (25–200 µg/mL) ونقيم حساسيتها عن طريق قياس معدل بقائها.
تُعد المتقدرات (الميتوكوندريا) المركز الاستقلابي الخلوي و"محطات الطاقة" في الخلية. وتؤدي أنواع الأكسجين التفاعلية (ROS) والبروتينات غير المطوية في المتقدرات إلى تحفيز استجابات البروتين غير المطوي المتقدرية وتحريض الإجهاد المتقدري31. ويمكن تحريض الإجهاد المتقدري بواسطة antrimycin A، وهو مثبط للمركب الثالث في المتقدرات يعمل على منع انتقال الإلكترونات ويسبب إنتاج أنواع الأكسجين التفاعلية32. ونحن نستخدم جرعات مختلفة من antimycin A (بتركيز 5–80 µg/mL) لتحديد الجرعة المثالية لاختبار مقاومة الإجهاد المتقدري.
عادةً ما ينتج الإجهاد التأكسدي عن السموم البيئية والجذور الحرة الخلوية الناتجة عن عملية التمثيل الغذائي. ويسبب الإجهاد التأكسدي تلفاً في البروتينات والدهون والحمض النووي DNA في جميع الكائنات الحية33. ويعد الباراكوات (Paraquat)، وهو مادة كيميائية مبيدة للأعشاب تقوم بنقل الإلكترونات إلى الأكسجين وتولد كميات مفرطة من جذور السوبر أكسيد، محفزاً قوياً للإجهاد التأكسدي34. وقد قمنا بتطبيق أربع جرعات متزايدة من الباراكوات (2.5–20 mM)، وأظهرنا نطاقاً من أقصى فترة بقاء يتراوح بين 3 إلى 12 يوماً في C. elegans.
من السهل إنتاج نتائج عالية التكرار لمقاومة الإجهاد في C. elegans باستخدام ظروف الإجهاد الأربعة هذه. وقد تم توثيق طرق مقاومة الإجهاد سابقاً35,36,37,38,39,40. ومقارنة بمراجعة نُشرت سابقاً تلخص مسببات إجهاد مختلفة وتحليلات البقاء35، يقدم هذا المقال بروتوكولات تفصيلية وعملية وخطوية لإجراء اختبارات إجهاد قابلة للتكرار ومتسقة. ركزت العديد من البروتوكولات المنشورة سابقاً على اختبار إجهاد واحد محدد، مثل الصدمة الحرارية36 أو الإجهاد التأكسدي38؛ بينما يستعرض هذا البروتوكول جميع اختبارات الإجهاد الأربعة المختلفة: الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد الميتوكوندري، والإجهاد التأكسدي. كما تعرض بروتوكولات اختبار الإجهاد المبلغ عنها سابقاً مقاييس نهاية مختلفة تعتمد على المراسلين الفلوريين، مثل المراسلين النسخيين الفلوريين الخاصين بمسارات معينة لإجهاد الشبكة الإندوبلازمية، والإجهاد الميتوكوندري، والإجهاد التأكسدي40، أو استجابة الصدمة الحرارية39؛ في حين يستخدم هذا البروتوكول اختبارات البقاء لقياس الصحة العامة لـ C. elegans بفعالية. والأهم من ذلك، قدم هذا البروتوكول معايرة للجرعات في جميع الاختبارات الأربعة لتوفير مراجع لنطاق الجرعة الفعالة التي يمكن اختيارها لاختبارات الإجهاد؛ كما قام هذا البروتوكول بتحسين المقياس الزمني (من ساعات إلى أيام) في اختبارات الإجهاد المختلفة؛ بالإضافة إلى ذلك، قدمنا دوراً جديداً لعصبون ينظم استجابات إجهاد متعددة، كمثال لاختبار ما إذا كانت العصبونات تنظم مقاومة الإجهاد.
يتطلب تطوير اختبار لمقاومة الإجهاد اختيار عامل إجهاد مناسب ومقياس تقييم موثوق. لقد كانت اختبارات بقاء C. elegans أدوات قوية لقياس العمليات الفسيولوجية، بما في ذلك طول العمر، ومقاومة الإجهاد، والعدوى المرضية. وتتمثل إحدى المزايا الرئيسية لاستخدام C. elegans في اختبارات البقاء في سهولة تحضير واختبار ديدان متزامنة من نفس العمر، وذلك بسبب تلقيحها الذاتي، وحجم الحضنة الكبير، ودورة نموها القصيرة التي تستغرق ثلاثة أيام من البيض إلى البالغين الشباب. وتعتبر الذكور نادرة في المجموعات الطبيعية من C. elegans المستزرعة، لذا لا تُستخدم عموماً في اختبارات البقاء، بما في ذلك هذا البروتوكول، وتُستخدم غالباً في التهجينات الجينية35. ومقارنة بطرق تقييم النقاط النهائية الأخرى (على سبيل المثال، المراسلين الفلوريين، وتراكم البروتينات والدهون)، فإن اختبارات البقاء فعالة في قياس الصحة العامة لـ C. elegans وتستغرق وقتاً قصيراً نسبياً للإكمال، يتراوح عادةً من ساعات إلى عدة أسابيع اعتماداً على جرعة عوامل الإجهاد. نحن نعتمد معدلات البقاء كمؤشر أساسي لمقاومة الإجهاد عبر سلالات مختلفة من C. elegans. ويتم تحديد البقاء من خلال القدرة على الحركة والاستجابة للتحفيز الميكانيكي اللطيف؛ حيث يُستخدم عدم الاستجابة للتحفيز لتعريف الوفاة في اختبارات الإجهاد لـ C. elegans. يمكن إجراء اختبارات البقاء في C. elegans إما في أوساط صلبة أو سائلة مع غذاء بكتيري35. ومع ذلك، فإن الأوساط السائلة ليست الموطن الطبيعي للديدان، وتُجبر الديدان على التخبط المستمر في المزرعة السائلة مما يؤدي إلى منحنى بقاء أقصر41. هنا، نستخدم الأوساط الصلبة لتقييم آثار تركيزات مختلفة من عامل الإجهاد على بقاء الديدان من النوع البري والديدان الطافرة التي تم استئصال عصبونها. قد توفر بيانات معايرة التركيز هذه إرشادات للباحثين الآخرين الذين يجرون اختبارات مماثلة لمقاومة الإجهاد.
البروتوكول
تجارب تشمل C. elegans أُجريت في جامعة ولاية كانساس، مانهاتن، كانساس، الولايات المتحدة الأمريكية، وفقاً لإرشادات السلامة البيولوجية والمختبرات المؤسسية. وبما أن C. elegans بما أنه كائن نموذجي من اللافقاريات، فإن موافقة لجنة أخلاقيات الحيوانات الفقارية لم تكن مطلوبة لهذه الدراسة. وتدرج تفاصيل جميع الكواشف والمعدات والبرمجيات والسلالات المستخدمة في جدول المواد.
1. تحضير أطباق NGM (وسط نمو النيماتودا) وتجهيز سلالة Escherichia coli OP50
- تحضير أطباق NGM
- وزن 3 g من NaCl، و17 g من Agar (مسحوق)، و2.5 g من Peptone، ثم إضافة 900 mL من الماء منزوع الأيونات فائق النقاء (ddH2O) وإكمال الحجم النهائي إلى 1 L، والتعقيم باستخدام الموصدة (autoclave). يُبرد الوسط حتى يصل إلى 60 °C تقريباً في حمام مائي درجة حرارته 60 °C.
- إضافة 1 mL من CaCl2 بتركيز 1 M (مُحضّر في ddH2O ومُعقم بالترشيح)، و1 mL من كوليسترول بتركيز 5 mg/mL (مُحضّر في الإيثانول ومُعقم بالترشيح)، و1 mL من MgSO4 بتركيز 1 M (مُحضّر في ddH2O ومُعقم بالترشيح)، و25 mL من KP Buffer بتركيز 1 M.
لتحضير KP Buffer، يُمزج 130 mL من K2HPO4 بتركيز 1 M مع 870 mL من KH2PO4 بتركيز 1 M مُحضّرين في ddH2O. بعد الخلط جيداً، يتم ضبط pH عند 6.0. عادةً ما تكون قيمة pH المقاسة بعد التحضير قريبة من 6.0 ولا تتطلب ضبطاً إضافياً. نطاق pH المقبول لـ KP buffer هو 5.8–6.2، مع استهداف pH بقيمة 6.0. تحقق من أن pH النهائي يقارب 6.0 قبل الاستخدام. إذا لزم الأمر، يتم الضبط إلى pH 6.0 باستخدام K2HPO4 بتركيز 1 M أو KH2PO4 بتركيز 1 M. - يُخلط الوسط جيداً ثم يُصب (NGM) في الأطباق (أطباق بتري). بالنسبة للأطباق مقاس 60 mm، يُصب 10 mL من وسط NGM لكل طبق؛ وبالنسبة للأطباق مقاس 35 mm، يُصب 3 mL من وسط NGM لكل طبق. تُترك أطباق NGM agar في درجة حرارة الغرفة (22–25 °C) على سطح مستوٍ لمدة 24 h على الأقل قبل تلقيح الغذاء البكتيري.
تنبيه: عند تحضير وصب NGM agar المنصهر، يجب استخدام قفازات مقاومة للحرارة ومعدات الوقاية الشخصية المختبرية المناسبة لمنع الحروق والتعرض للسوائل الساخنة.
- تحضير الغذاء البكتيري من Escherichia coli OP50 لـ Caenorhabditis elegans
- تخطيط بكتيريا Escherichia coli OP50 على طبق Luria-Bertani (LB) agar وتحضينها عند 37 °C طوال الليل (أطباق LB agar: إضافة 1 g من NaCl، و1 g من tryptone، و0.5 g من yeast extract، و1.5-2.0 g من مسحوق agar إلى 100 mL من ddH2O، والتعقيم بالموصدة لمدة 20 min، والتبريد إلى 50-60 °C ثم صب الوسط في الأطباق. توضع الأطباق على سطح مستوٍ ونظيف وتُترك لتجف).
- تلقيح مستعمرة واحدة في 100 mL من وسط LB السائل (وسط LB: إضافة 1 g من NaCl، و1 g من tryptone، و0.5 g من yeast extract إلى 100 mL من ddH2O، والتعقيم بالموصدة لمدة 20 min. يُبرد الوسط إلى أقل من 37 °C قبل التلقيح).
- زراعة البكتيريا في حاضنة هزازة عند 37 °C حتى يصل المعلق البكتيري إلى كثافة ضوئية عند 600 nm (OD600) تبلغ حوالي 0.3 في تخفيف بمقدار 10 أضعاف للمعلق البكتيري (خلط 100 µL من المعلق البكتيري مع 900 µL من وسط LB). يتم حصاد المعلق البكتيري وتخزينه عند 4 °C. يمكن تخزين الغذاء البكتيري لمدة تصل إلى أسبوع واحد قبل التلقيح على طبق NGM40.
- استخدام ماصة تكرارية لتلقيح بكتيريا OP50 على أطباق NGM. يتم تلقيح 200 µL للأطباق مقاس 60 mm، و100 µL للأطباق مقاس 35 mm. تُترك أطباق NGM الملقحة في درجة حرارة الغرفة (~22–25 °C) على سطح مستوٍ لمدة 24 h على الأقل قبل الاستخدام. لا تترك الأطباق في درجة حرارة الغرفة لأكثر من 48 h. تُرتّب الأطباق الملقحة في صندوق بلاستيكي نظيف وتُخزن عند 4 °C.
ملاحظة: في حال استخدام أطباق غير مهواة، قد تحتاج بكتيريا OP50 الملقحة لوقت أطول للجفاف.
تنبيه: يجب التعامل مع مزارع E. coli OP50 وفقاً للممارسات الميكروبيولوجية المناسبة، مع ارتداء معطف المختبر والقفازات وواقي العينين. يتم تطهير أسطح العمل والتخلص من النفايات البكتيرية وفقاً لإجراءات السلامة البيولوجية المؤسسية.
2. صيانة ومزامنة C. elegans
تم تلخيص سير العمل لهذا القسم في الشكل 1A.
- يتم الحفاظ على الديدان عند 20 °C على أطباق NGM المزروعة بسلالة OP50 عن طريق نقل البالغين إلى أطباق NGM جديدة مزروعة بسلالة OP50 مرتين أسبوعياً لتجنب تجويع الديدان. يتم وضع 20–40 دودة بالغة حاملة للبويضات على طبق NGM جديد مزروع بسلالة OP50 باستخدام ملقط سلكي بلاتيني، مع إزالة أي يرقات أو بويضات تنتقل مع البالغات الحاملات من الطبق الأصلي. إن استخدام عدد معروف من الديدان الحاملة يسهل دقة التسجيل ويضمن إزالتها بالكامل في الخطوة اللاحقة (القسم 1.2).
ملاحظة: يكفي وجود 20–40 دودة حاملة لإنتاج 80–120 بيضة في غضون 2 h، بناءً على حالة السلالة البرية (N2). تكون عملية وضع البيض في نافذتها المثالية عندما تكون البالغات الحاملات في اليوم الأول (اليوم 1) من مرحلة البلوغ. بالنسبة للسلالات ذات الخصوبة المنخفضة أو المرتفعة، يتم ضبط عدد الديدان الحاملة وفقاً لذلك. الهدف من هذه الخطوة هو الحصول على عدد كافٍ من البويضات التي ستنمو لتصبح ديداناً متزامنة لاختبارات الإجهاد اللاحقة. - بعد حوالي 2 h، يتم إزالة الديدان الحاملة من الطبق. يتم عد عدد الديدان الحاملة التي تمت إزالتها في هذه الخطوة والتأكد من إزالة جميع الديدان الـ 20–40 الحاملة التي وضعت على الطبق.
- تُحضن الأطباق التي تحتوي على البويضات عند 20 °C حتى تصل الديدان إلى مرحلة L4 المتأخرة لإجراء اختبارات الإجهاد. يتم مزامنة الديدان في مرحلة L4 لتقليل التباين الناتج عن الاختلافات في عمر البالغين والحالة التناسلية12,35,37,38,40,42,43. عند 20 °C، تصل الديدان إلى مرحلة L4 المتأخرة المتزامنة بشكل موحد بعد حوالي 54–58 h من وضع البويضات على أطباق الآغار الصلبة في السلالة البرية (بناءً على ملاحظاتنا والمراجع 36,40).
ملاحظة: بالنسبة للسلالات ذات النمو المتأخر، يتم ضبط توقيت المزامنة لمرحلة L4 المتأخرة وفقاً لمعدلات نموها النوعية.
تنبيه: يجب التعامل مع C. elegans باستخدام الممارسات الميكروبيولوجية المناسبة وارتداء معطف المختبر والقفازات لتقليل التعرض للمواد البيولوجية ومنع التلوث.
3. حالة الإجهاد وجمع البيانات
- مقايسة الإجهاد الحراري
يُلخص سير العمل في هذا القسم في الشكل 1ب.- قم بمزامنة الديدان لتصل إلى مرحلة اليرقة الرابعة المتأخرة (L4) (القسم 2) وحافظ عليها عند 20 °Cانقل الديدان المتزامنة في المرحلة L4 إلى أطباق NGM قطرها 35 ملم ومزروعة ببكتيريا OP50 (القسم 1)، مع استخدام 4 أطباق لكل مجموعة ككررات تقنية، وبمعدل 30-35 دودة لكل طبق. يرجى الرجوع إلى القسم 4 لمعرفة إعداد الكررات البيولوجية.
- ضع الأطباق التي تحتوي على الديدان في مرحلة L4 المتأخرة في جهاز تحضين بدرجة حرارة 30 أو 35 أو 37 °C حضّانة. تأكد من وصول الحضّانة إلى درجة الحرارة المحددة قبل وضع الأطباق التي تحتوي على الديدان التي خضعت للفحص بداخلها. وكان متوسط بقاء الديدان من النوع البري تحت درجة حرارة 30 أو 35 أو 37 °C تتراوح من حوالي 4 ساعات إلى 3 أيام (الشكل 2ب-D) مقارنة بمتوسط بقاء على قيد الحياة يبلغ نحو 20 يوماً في الظروف الفسيولوجية غير المجهدة (الشكل 2A).
خطوة حرجة: ضع جميع أطباق المقايسة بحيث يكون جانب الآجار لأسفل في طبقة واحدة داخل الـ 35 °C حضّانة للسماح بتوازن حراري سريع وموحد.
ملاحظة: أثناء اختبارات الإجهاد الحراري عند 30 أو 35 أو 37 °Cلا تضع معظم الديدان البيض، وفي الحالات النادرة التي يتم فيها وضع البيض، لا يُلاحظ فقس أي منها. وبناءً على ذلك، لا تبرز الحاجة إلى نقل الديدان إلى أطباق جديدة. - سجّل عدد الديدان الميتة عند كل نقطة زمنية في كل طبق من المكررات التقنية، ودوّن هذا العدد في ورقة بيانات التسجيل. يتم تسجيل بقاء الديدان على قيد الحياة كل ساعة تحت 35 °C أو 37 °C الإجهاد الحراري ومرة واحدة يومياً تحت 30 °C الإجهاد الحراري. يتم إجراء التقييم باستخدام مجهر تشريحي في درجة حرارة الغرفة. وأثناء التقييم، تُخرج فقط الصفيحة التي يتم فحصها من الحاضنة، بينما تظل جميع الصفائح الأخرى في درجة حرارة الإجهاد الحراري المحددة لتقليل انقطاع التعرض للإجهاد الحراري. وتساعد هذه الممارسة في الحفاظ على اتساق الظروف التجريبية عبر جميع العينات.
خطوة حاسمة: لتقليل فترة انقطاع التعرض للإجهاد الحراري، يجب ألا تبقى كل صفيحة خارج الحاضنة لأكثر من 3 دقائق خلال كل جلسة تقييم. وبناءً على معدل بقاء الديدان على قيد الحياة في نقاط زمنية مختلفة أثناء اختبار الإجهاد، يستغرق تقييم الصفيحة الواحدة في درجة حرارة الغرفة عادةً ما بين 30 ثانية و3 دقائق تقريباً. إن ترتيب عملية التقييم أمر مهم نظراً للوقت المستغرق في التقييم اليدوي؛ لذا نوصي باتباع ترتيب يتم فيه تقييم مكرر تقني واحد من كل حالة حتى يتم الانتهاء من جميع المكررات التقنية في كافة الحالات. على سبيل المثال، في حال وجود ثلاث حالات/مجموعات (أ، ب، ج) مع 4 صفائح كمكررات تقنية، يتم ترتيب عملية التقييم على النحو التالي: أ1، ب1، ج1. → A2، B2، C2 → A3، B3، C3 → A4, B4, C4. - قيّم بقاء الديدان بناءً على سواء كان من الممكن ملاحظة أي استجابة حركية للتحفيز الفيزيائي اللطيف. تُصنف الديدان التي تتحرك بنشاط على أنها حية، ولا حاجة لتحفيزها فيزيائيًا. أما بالنسبة للديدان التي لا تظهر حركة تلقائية، فيتم تحفيزها بلطف عن طريق لمس المنطقة الخلفية من الجسم مرتين باستخدام ملقط من سلك البلاتين. ويُسجل عدم وجود استجابة حركية على أنها حالة وفاة، وتُزال الدودة الميتة من الطبق بعد تسجيلها. وتكفي ملاحظة الدودة لمدة ثانيتين تقريبًا بعد كل لمسة لتحديد ما إذا كانت هناك استجابة حركية. ويُوصى باستخدام عداد يدوي لتسجيل عدد الديدان الحية والميتة أثناء العد وللحد من أخطاء العد. ولضمان عد جميع الديدان مرة واحدة فقط وعدم تكرار عدها، ضع ورقة بلاستيكية شفافة مقسمة إلى مربعات تحت الطبق، أو ارسم شبكة على قاع الطبق لتقسيمه إلى أقسام شبكية لغرض العد.
ملاحظة: أعد الأطباق إلى حاضنة ظروف الحرارة فوراً بعد عملية التقييم. - راقب بقاء الديدان على فترات زمنية منتظمة حتى تموت جميع الحيوانات أو يتم استبعادها وفقاً للمعايير المحددة مسبقاً. اجمع بيانات البقاء المسجلة واستخدمها لإنشاء منحنيات البقاء لإجراء التحليلات اللاحقة.
- مقايسة إجهاد الشبكة الإندوبلازمية
يُوجز سير العمل في هذا القسم في الشكل 1ج.- تحضير أطباق وسط اختبار إجهاد الشبكة الإندوبلازمية. أضف المحلول المخزني للتونيكاميسين (10 ملجم/مل في ثنائي ميثيل سلفوكسيد (DMSO)، ويُحفظ عند درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) ليصل إلى تركيز نهائي قدره 25 أو 50 أو 100 أو 200 µg/mLعلى سبيل المثال، لتحضير 1 لتر من وسط مقايسة إجهاد الشبكة الإندوبلازمية (ER stress assay medium)، أضف 2.5 أو 5 أو 10 أو 20 ملليلتر من المحلول المخزون للتونيكاميسين (tunicamycin) (بتركيز 10 مجم/مل في DMSO) لتحقيق تركيز نهائي قدره 25 أو 50 أو 100 أو 200 µg/mL التونيكاميسين (tunicamycin) في أطباق الوسط الزرعي. وفي حال إدراج مجموعة ضابطة غير معالجة في المقايسة، يُضاف نفس مقدار الـ DMSO (2.5 أو 5 أو 10 أو 20 مل) إلى الوسط الزرعي الخاص بالمجموعة الضابطة المقابلة.
خطوة حرجة: بَرِّد وسط NGM المعقم بجهاز الأوتوكلاف إلى حوالي 55 °C مع التحريك، أضف التونيكاميسين (tunicamycin) حتى الوصول إلى التركيز النهائي المطلوب. اخلط المزيج جيداً قبل صب 3 مل من وسط NGM مع التونيكاميسين في كل طبق قطر 35 مم. ازرع في كل طبق آجار قطر 35 مم... 100 µL بكتيريا OP50 (القسم 1.2). يمكن تخزين أطباق NGM المزروعة ببكتيريا OP50 مع التونيكاميسين في 4 °C لمدة تصل إلى أسبوع واحد قبل الاستخدام.
تنبيه: مادة التونيكاميسين (Tunicamycin) مادة خطرة ويجب التعامل معها داخل خزانة استخلاص الأدخنة الكيميائية مع ارتداء معطف المختبر والقفازات وواقي العينين. تجنب استنشاق المادة أو ملامستها للجلد أو العينين. - قم بمزامنة الديدان لتصل إلى المرحلة المتأخرة من طور اليرقة الرابع L4 (القسم 2) وحافظ عليها عند 20 °Cانقل الديدان المتزامنة في المرحلة اليرقية الرابعة (L4) إلى أطباق NGM بقطر 35 مم ومزروعة ببكتيريا OP50 وتحتوي على التونيكاميسين (tunicamycin)، مع استخدام 4 أطباق لكل مجموعة ككرارات تقنية، وبواقع 30-35 دودة لكل طبق. ارجع إلى القسم 4 لإعداد الكرارات البيولوجية.
- تحضن جميع الأطباق عند 20 °Cسجّل عدد الديدان الميتة يومياً. وكان متوسط بقاء الديدان من النوع البري تحت تأثير 25، أو 50، أو 100 أو 200 µg/mL تتراوح فترة التعرض للتونيكامايسين (tunicamycin) بين 8 إلى 11 يومًا تقريبًا (الشكل 2E،ف) مقارنة بمتوسط بقاء على قيد الحياة يبلغ حوالي 20 يوماً في حالة عدم التعرض لإجهاد فسيولوجي (الشكل 2أ).
ملاحظة: في مقايسة إجهاد الشبكة الإندوبلازمية المستحث بالتونيكاميسين، توضع البيوض ولكنها لا تفقس على أطباق الآغار التي تحتوي على التونيكاميسين؛ لذا، فإن نقل الديدان إلى أطباق جديدة ليس ضرورياً. - قم بحساب عدد الديدان الميتة في كل طبق من المكررات التقنية يومياً، وسجل العدد في ورقة بيانات التسجيل. يتم التسجيل يدوياً باستخدام مجهر تشريحي على طاولة المختبر في درجة حرارة الغرفة. تُسجل الديدان التي تتحرك بنشاط على أنها حية دون الحاجة إلى تحفيز بدني. أما بالنسبة للديدان التي لا تظهر حركة تلقائية، فقم بتحفيزها برفق عن طريق لمس المنطقة الخلفية من الجسم مرتين باستخدام ملقط من سلك البلاتين. يُسجل عدم الاستجابة على أنه موت، وتُزال الدودة الميتة من الطبق بعد تسجيلها. يُوصى باستخدام عداد يدوي لضمان دقة العد. ولضمان عد جميع الديدان مرة واحدة وعدم تكرار عدها، ضع ورقة بلاستيكية شفافة مقسمة إلى شبكة تحت الطبق، أو ارسم شبكة على قاع الطبق لتقسيمه إلى أقسام شبكية لغرض العد.
ملاحظة: أعد الأطباق إلى الحضّانة فوراً بعد عملية التقييم. احتفظ بالديدان في الحضّانة لمدة 24 ساعة تقريباً قبل التقييم التالي. - راقب بقاء الديدان على قيد الحياة يومياً حتى تموت جميع الحيوانات أو يتم استبعادها وفقاً للمعايير المحددة مسبقاً. قم بتجميع بيانات البقاء المسجلة واستخدمها لإنشاء منحنيات البقاء من أجل التحليل اللاحق.
- تحضير أطباق وسط اختبار إجهاد الشبكة الإندوبلازمية. أضف المحلول المخزني للتونيكاميسين (10 ملجم/مل في ثنائي ميثيل سلفوكسيد (DMSO)، ويُحفظ عند درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) ليصل إلى تركيز نهائي قدره 25 أو 50 أو 100 أو 200 µg/mLعلى سبيل المثال، لتحضير 1 لتر من وسط مقايسة إجهاد الشبكة الإندوبلازمية (ER stress assay medium)، أضف 2.5 أو 5 أو 10 أو 20 ملليلتر من المحلول المخزون للتونيكاميسين (tunicamycin) (بتركيز 10 مجم/مل في DMSO) لتحقيق تركيز نهائي قدره 25 أو 50 أو 100 أو 200 µg/mL التونيكاميسين (tunicamycin) في أطباق الوسط الزرعي. وفي حال إدراج مجموعة ضابطة غير معالجة في المقايسة، يُضاف نفس مقدار الـ DMSO (2.5 أو 5 أو 10 أو 20 مل) إلى الوسط الزرعي الخاص بالمجموعة الضابطة المقابلة.
- مقايسة الإجهاد الميتوكوندري
يُلخص سير العمل في هذا القسم في الشكل 1د.- تحضير أطباق وسط مقايسة الإجهاد الميتوكوندري. أضف المحلول المخزون من antimycin A (بتركيز 5 ملغ/مل في DMSO، ويُحفظ عند درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) ليصل إلى تركيز نهائي قدره 5، أو 10، أو 20، أو 40، أو 80 µg/mLعلى سبيل المثال، لتحضير 1 لتر من وسط مقايسة الإجهاد الميتوكوندري، أضف 1 أو 2 أو 4 أو 8 أو 16 مل من المحلول المخزون لـ antimycin A (بتركيز 5 مجم/مل في DMSO). للوصول إلى تركيز نهائي قدره 5 أو 10 أو 20 أو 40 أو 80 µg/mL أنتيمايسين أ (antimycin A) في أطباق الوسط الغذائي. وفي حال إدراج ضابطة غير معالجة في المقايسة، تُضاف الكمية نفسها من ثنائي ميثيل سلفوكسيد (DMSO) (1 أو 2 أو 4 أو 8 أو 16 مل) إلى الوسط الغذائي الخاص بالضابطة المقابلة.
خطوة حرجة: بَرِّد وسط NGM المعقم بجهاز الأوتوكلاف إلى حوالي 55 °C أثناء التحريك، أضف antimycin A حتى الوصول إلى التركيز النهائي المطلوب. اخلط المزيج جيداً قبل صب 3 ملليلتر من وسط NGM المحتوي على antimycin A في كل طبق بقطر 35 ملم. استزرع كل طبق أغار بقطر 35 ملم بـ 100 µL بكتيريا OP50 (القسم 1.2). يمكن تخزين أطباق NGM المزروعة ببكتيريا OP50 والمحتوية على antimycin A في 4 °C لمدة تصل إلى أسبوع واحد قبل الاستخدام.
تنبيه: مادة Antimycin A خطرة ويجب التعامل معها داخل خزانة استخلاص الغازات الكيميائية (fume hood) مع ارتداء معطف المختبر والقفازات المناسبة وواقي العينين. تجنب استنشاق المادة أو ملامستها للجلد أو العينين. - قم بمزامنة الديدان لتصل إلى مرحلة L4 المتأخرة (القسم 2) وحافظ عليها عند 20 °Cانقل الديدان المتزامنة في المرحلة L4 إلى أطباق NGM بقطر 35 ملم مستزرعة بـ OP50 وتحتوي على antimycin A، مع استخدام 4 أطباق لكل مجموعة كمكررات تقنية، وبمعدل 30-35 دودة لكل طبق. راجع القسم 4 لمعرفة إعداد المكررات البيولوجية.
- تُحضن جميع الأطباق عند 20 °Cسجل عدد الديدان الميتة يومياً.
خطوة حرجة: نظرًا لمشكلات في فقس البيض ونمو اليرقات، يتم نقل الديدان إلى أطباق جديدة كل يومين خلال الأيام العشرة الأولى. يتم التوقف عن النقل عندما لا يُلاحظ وجود يرقات أو بيض جديد على الطبق. يجب أن تخضع جميع المكررات التقنية لنفس عدد مرات النقل؛ فعلى سبيل المثال، عندما يتطلب طبق واحد فقط النقل، يجب نقل جميع الأطباق في هذه المكررة البيولوجية في الوقت ذاته. يمثل متوسط بقاء الديدان من النوع البري تحت تركيزات 5 أو 10 أو 20 أو 40 أو 80 µg/mL تتراوح فترة استخدام antimycin A من حوالي 1.5 إلى 5 أيام (الشكل 2G،هـ) مقارنةً بمتوسط بقاء على قيد الحياة يبلغ نحو 20 يوماً في الظروف غير المجهدة فسيولوجياً (الشكل 2أ).
ملاحظة: يتطلب اختبار الإجهاد الميتوكوندري المستحث بواسطة Antimycin A نقل الديدان إلى أطباق جديدة كل يومين خلال الأيام العشرة الأولى. يتم إجراء عملية النقل لمنع التكدس والتجويع، وللتمييز بين الديدان التجريبية ونسلها. - قم بحساب عدد الديدان الميتة في كل طبق من المكررات التقنية يومياً، وسجل العدد في ورقة بيانات التسجيل. يتم التسجيل يدوياً باستخدام مجهر تشريحي على طاولة المختبر في درجة حرارة الغرفة. تُسجل الديدان التي تتحرك بنشاط على أنها حية ولا حاجة لتحفيزها فيزيائياً. أما الديدان التي لا تظهر حركة تلقائية، فقم بتحفيزها برفق عن طريق لمس المنطقة الخلفية من الجسم بمرود من سلك البلاتين مرتين. ويُسجل عدم الاستجابة على أنه موت، ثم تُزال الدودة الميتة من الطبق بعد تسجيلها. يوصى باستخدام عداد يدوي لضمان دقة العد. ولضمان عد جميع الديدان مرة واحدة وعدم تكرار عدها، ضع ورقة بلاستيكية شفافة مربعات أسفل الطبق، أو ارسم شبكة. على الجزء السفلي من الطبق لتقسيم الأطباق إلى أقسام شبكية لغرض العد.
ملاحظة: أعد الديدان إلى الحاضنة فوراً بعد عملية التقييم. احتفظ بالديدان في الحاضنة لمدة 24 ساعة تقريباً قبل التقييم التالي. - راقب بقاء الديدان على قيد الحياة يومياً حتى موت جميع الحيوانات أو استبعادها وفقاً للمعايير المحددة مسبقاً. قم بتجميع بيانات البقاء المسجلة واستخدمها لإنشاء منحنيات البقاء من أجل التحليل اللاحق.
- تحضير أطباق وسط مقايسة الإجهاد الميتوكوندري. أضف المحلول المخزون من antimycin A (بتركيز 5 ملغ/مل في DMSO، ويُحفظ عند درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) ليصل إلى تركيز نهائي قدره 5، أو 10، أو 20، أو 40، أو 80 µg/mLعلى سبيل المثال، لتحضير 1 لتر من وسط مقايسة الإجهاد الميتوكوندري، أضف 1 أو 2 أو 4 أو 8 أو 16 مل من المحلول المخزون لـ antimycin A (بتركيز 5 مجم/مل في DMSO). للوصول إلى تركيز نهائي قدره 5 أو 10 أو 20 أو 40 أو 80 µg/mL أنتيمايسين أ (antimycin A) في أطباق الوسط الغذائي. وفي حال إدراج ضابطة غير معالجة في المقايسة، تُضاف الكمية نفسها من ثنائي ميثيل سلفوكسيد (DMSO) (1 أو 2 أو 4 أو 8 أو 16 مل) إلى الوسط الغذائي الخاص بالضابطة المقابلة.
- مقايسة الإجهاد التأكسدي
يتم تلخيص سير العمل لهذا القسم في الشكل 1هـ.- قم بتحضير أطباق وسط اختبار الإجهاد التأكسدي. أضف المحلول المخزون من الباراكوات (0.5 مولار في ماء مقطر ddH2O).2أو يُحفظ في درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) للوصول إلى تركيز نهائي قدره 2.5، أو 5، أو 10، أو 20 ميلي مولار.
خطوة حرجة: بَرّد وسط NGM الذي تم تعقيمه بالموصدة (autoclaved) إلى حوالي 55 °C مع الاستمرار في التقليب، أضف الباراكوات (paraquat) حتى الوصول إلى التركيز النهائي المطلوب. اخلط المزيج جيداً قبل صب 3 مل من وسط NGM المحتوي على الباراكوات في أطباق بقطر 35 مم. ازرع في كل طبق آغار بقطر 35 مم... 100 µL بكتيريا OP50 (القسم 1.2). يمكن استزراع بكتيريا OP50 قبل يومين إلى 3 أيام من وقت المقايسة. ويمكن تخزين أطباق NGM المستزرعة ببكتيريا OP50 والمحتوية على الباراكوات في 4 °C لمدة تصل إلى أسبوع واحد قبل الاستخدام.
تنبيه: مادة الباراکوات (Paraquat) شديدة السمية، ويجب التعامل معها داخل خزانة استخلاص الغازات الكيميائية مع ارتداء القفازات المناسبة، ومعطف المختبر، وواقي العينين. تجنب استنشاق المادة، أو بلعها، أو ملامستها للجلد أو العينين. - قم بمزامنة الديدان لتصل إلى المرحلة المتأخرة من طور اليرقة الرابع L4 (القسم 2) وحافظ عليها في 20 °Cانقل الديدان المتزامنة في المرحلة L4 إلى أطباق NGM بقطر 35 ملم مستزرعة ببكتيريا OP50 وتحتوي على الباراكوات، مع استخدام 4 أطباق لكل مجموعة كمكررات تقنية، وبواقع 30-35 دودة في الطبق الواحد. يُرجى الرجوع إلى القسم 4 لإعداد المكررات البيولوجية.
- قم بتحضين جميع الأطباق عند 20 °Cسجل عدد الديدان الميتة يومياً. يتراوح متوسط بقاء الديدان من النوع البري على قيد الحياة تحت تأثير الباراكوات بتركيز 2.5 أو 5 أو 10 أو 20 ميليمولار من حوالي 2.5 إلى 5 أيام (الشكل 2I،ج)، مقارنة بمتوسط بقاء على قيد الحياة يبلغ حوالي 20 يومًا في الظروف التي لا تتعرض لإجهاد فسيولوجي (الشكل 2أ).
ملاحظة: في مقايسة الإجهاد التأكسدي المستحث بواسطة الباراكوات (paraquat)، لا يعد نقل الديدان إلى أطباق جديدة أمراً ضرورياً. يتواجد عدد محدود من اليرقات في أطباق الباراكوات، وتتوقف هذه اليرقات عند المرحلة التطورية L2 أو قبلها طوال فترة المقايسة، لذا فهي لا تعيق تحديد المجموعات المتزامنة ولا تسبب المجاعة. ونظراً للإجهاد الفيزيائي الذي قد ينجم عن عملية نقل الديدان، فلا يوصى بنقلها أثناء إجراء المقايسة. - قم بحساب عدد الديدان الميتة في كل طبق من المكررات التقنية يومياً، وسجل العدد في ورقة بيانات التسجيل. يتم إجراء التسجيل يدوياً باستخدام مجهر تشريحي على طاولة المختبر في درجة حرارة الغرفة. تُسجل الديدان التي تتحرك بنشاط على أنها حية، ولا حاجة إلى تحفيز فيزيائي. أما بالنسبة للديدان التي لا تظهر حركة تلقائية، فقم بتحفيزها برفق عن طريق لمس المنطقة الخلفية من الجسم باستخدام ملقط سلكي بلاتيني مرتين. يُسجل عدم الاستجابة على أنه موت، وتُزال الدودة الميتة من الطبق بعد تسجيلها. ويُنصح باستخدام عداد يدوي لضمان دقة الحساب. ولضمان حساب جميع الديدان مرة واحدة فقط وعدم تكرار حسابها، ضع ورقة بلاستيكية شفافة مقسمة إلى شبكة تحت الطبق، أو ارسم شبكة على قاع الطبق لتقسيمه إلى أقسام شبكية لغرض العد.
ملاحظة: أعد الديدان إلى الحاضنة فوراً بعد عملية التقييم. احتفظ بالديدان في الحاضنة لمدة 24 ساعة تقريباً قبل عملية التقييم التالية. - راقب بقاء الديدان على قيد الحياة يومياً حتى تموت جميع الحيوانات أو يتم استبعادها وفقاً للمعايير المحددة مسبقاً. قم بتجميع بيانات البقاء المسجلة واستخدمها لإنشاء منحنيات البقاء من أجل التحليل اللاحق.
- قم بتحضير أطباق وسط اختبار الإجهاد التأكسدي. أضف المحلول المخزون من الباراكوات (0.5 مولار في ماء مقطر ddH2O).2أو يُحفظ في درجة حرارة –20 °C) في وسط NGM السائل (من القسم 1.1.2) للوصول إلى تركيز نهائي قدره 2.5، أو 5، أو 10، أو 20 ميلي مولار.
4. تحليل البيانات
- سجل عدد الديدان الميتة في كل طبق من المكررات التقنية عند كل نقطة زمنية. تُسجل بيانات النفوق في ورقة رصد منظمة حسب النقطة الزمنية (بالساعات أو الأيام بعد بدء حالة الإجهاد)، والمجموعة التجريبية (سلالات مختلفة أو ظروف معالجة مختلفة)، والمكرر التقني (الطبق 1، 2، 3، أو 4). وفي كل فاصل زمني للرصد (ساعياً أو يومياً، حسب نوع المقايسة)، يُسجل عدد الديدان الميتة بشكل منفصل لكل طبق، ويتم تتبع النفوق التراكمي حتى اكتمال المقايسة.
- أدخل بيانات الوفيات من كل نقطة زمنية للتقييم في برنامج OASIS 2 (التطبيق الإلكتروني لتحليل البقاء 2).44 لإنشاء منحنى كابلان-ماير للبقاء على قيد الحياة وإجراء تحليل إحصائي باستخدام اختبار رتبة السجل (log-rank). وبدلاً من ذلك، يمكن حساب معدل الوفيات كنسبة مئوية للديدان النافقة في نقاط زمنية محددة، ومقارنتها بين المجموعات باستخدام اختبار ستودنت (Student's t-test) غير المقترن ثنائي الذيل. اختبار t (لمجموعتين) أو تحليل التباين أحادي الاتجاه (one-way ANOVA) متبوعاً باختبار توكي للمقارنات المتعددة (لثلاث مجموعات أو أكثر).
ملاحظة: تُسجل الديدان التي تظهر تمزقاً أو فقساً قاتلاً للأم (التكيس) على أنها ميتة في وقت ملاحظتها وذلك لتعكس معدل البقاء الإجمالي. وقد شملت منحنيات البقاء الواردة في النتائج التمثيلية أدناه الديدان المتمزقة والديدان المتكيسة. كما سُجلت أعداد الديدان المستبعدة من الظروف المختلفة في الجدول التكميلي 1. تُعامل الديدان التي تخرج من لوحة المقايسة، أو تجف على جدار اللوحة، أو تكون مفقودة أثناء عملية التقييم على أنها ملاحظات خاضعة للرقابة (censored observations) وتُستبعد من تحليل البقاء اللاحق. وتُسجل الحيوانات التي تظهر حركة ضعيفة ولكنها تستجيب للمس اللطيف على أنها حية. كما تُستبعد من تحليل البقاء الديدان التي تظهر عيوباً في وضع البيض قبل بدء المقايسة. - يجب إجراء جميع اختبارات الإجهاد في ثلاث مكررات بيولوجية مستقلة على الأقل يتم تنفيذها في أيام مختلفة. وتتكون كل مكررة بيولوجية من أربع أطباق مكررات تقنية تحتوي على الديدان. يتم تجميع البيانات من المكررات التقنية داخل المكررة البيولوجية الواحدة لإنشاء منحنى بقاء واحد. وتُحلل المكررات البيولوجية المستقلة بشكل منفصل وتُعرض كمجموعات بيانات فردية بدلاً من تجميعها. يتم تنفيذ كل مكررة بيولوجية باستخدام أوساط مُحضرة بشكل مستقل ودفعات جديدة من المركبات المحفزة للإجهاد. وتعد البروتوكولات الموضحة أعلاه خطوات لإنتاج مكررة بيولوجية واحدة لكل اختبار إجهاد. ويتم استبعاد الذكور، بينما يتم تضمين الخناثى وتحليلهم فقط في هذا البروتوكول.
ملاحظة: لم يتم التحكم في درجة رطوبة الحاضنات في هذا البروتوكول، بينما تم التحكم بدقة في درجة حرارة الحاضنة لتطابق درجة الحرارة التجريبية. لم تُجرَ التجارب المذكورة هنا تحت ظروف التعمية، وكان الباحث على دراية بالنمط الجيني وظروف المعالجة أثناء عملية التقييم. ويُوصى باتباع أسلوب التعمية للنمط الجيني وظروف المعالجة كلما كان ذلك ممكناً لتقليل انحياز التقييم المحتمل.
النتائج
باستخدام البروتوكولات الموضحة أعلاه، استخدمنا أولاً ديدان N2 من النوع البري (WT) لفحص بقاء الديدان تحت مجموعة من الجرعات المتزايدة من جميع عوامل الإجهاد الأربعة: الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد الميتوكوندري، والإجهاد التأكسدي. بعد ذلك، استخدمنا سلالة ذات استئصال عصبي لاختبار دور العصبون البيني RIC في مقاومة الإجهاد مقارنةً بديدان WT.
معايرة جرعة الإجهاد الحراري ومقارنة مقاومة الإجهاد الحراري في سلالة الاستئصال RIC
تحت درجة الحرارة الفسيولوجية لـ 20 °C، تعيش الديدان من النوع البري (WT) متوسط عمر يبلغ 20.67 يومًا (الشكل 2أ). وبناءً على خطوات مقايسة الإجهاد الحراري المعروضة في القسم 3.1، قمنا بقياس بقاء النوع البري (WT) في ظل درجات حرارة مرتفعة بلغت 30 و35 و 37 °C مع زيادة جرعات الإجهاد الحراري. وأظهرت البيانات أن الديدان من النوع البري (WT) تعيش متوسط عمر يبلغ 3.11 يوماً عند 30 °C (الشكل 2ب)؛ وتعيش ديدان WT بمتوسط بقاء قدره 5.36 ساعة عند 35 °C و 4.89 ساعة عند 37 °C (الشكل 2ج). وأشارت هذه النتائج إلى انخفاض ملحوظ في معدلات البقاء على قيد الحياة في ظل درجات الحرارة المرتفعة. وأظهرت التحليلات الإحصائية و P تُعرض القيم بالتفصيل في الجدول التكميلي 2 وتوضيحات الأشكال. وتوفر هذه البيانات معلومات موثوقة للباحثين لاختيار درجة حرارة الإجهاد المثلى والنطاق الزمني المناسب عند تصميم مقايسة الإجهاد الحراري. ويمكن للباحثين استخدام 30 °C لفحص بقاء الديدان على قيد الحياة على مدار عدة أيام أثناء استخدام 35 °C أو 37 °C لتحقيق تقييم أسرع لبقاء الديدان على قيد الحياة خلال عدة ساعات.
استخدمنا بعد ذلك درجة حرارة 35 °C كحالة إجهاد حراري لتقييم تأثير استئصال عصبونات RIC على معدل البقاء مقارنة بحيوانات WT. توفر درجة الحرارة هذه مستوى متوسطاً من الإجهاد الحراري، مما يتجنب الشدة القصوى لدرجة حرارة 37 °C مع إحداث استجابة أكثر قوة من درجة حرارة 30 °C، وتؤدي إلى إتمام مقايسة البقاء في غضون 12 h تقريباً.
تُعد عصبونات RIC زوجاً من العصبونات البينية الأوكتوبامينية التي تقع في منطقة الرأس في C. elegans9,10. وقد تم إنتاج سلالة مستأصلة العصبونات RIC عن طريق التعبير عن جين caspase-3 مدفوعاً بمحفز الجين tbh-1، واستُخدمت سابقاً45. باختصار، تم دمج محفز tbh-1 في البلازميدات المانحة mec-18p::caspase-3 (p12)::nz و mec-18p cz::caspase-3 (p17) لاستبدال محفز mec-18. تم حقن ثلاثة تركيبات جينية وهي tbh-1p::caspase-3(p12)::nz (20 ng/µL)، و tbh-1p::cz::caspase-3(p17) (20 ng/µL)، و tbh-1p::GFP (20 ng/µL، كعلامة لعصبونات RIC لتحديد ما إذا كانت قد استؤصلت) بالتزامن مع علامة الحقن المشترك الفلورية myo-3p::GFP (5 ng/µL) في سلالة N2 من النوع البري لإنتاج سلالات الاستئصال الجيني لعصبونات RIC. تم الحفاظ على ثلاثة خطوط محقونة بشكل مستقل كسلالة لاستئصال عصبونات RIC. حوفظ على الخطوط المعدلة وراثياً عن طريق اختيار الديدان التي تحمل العلامة الفلورية myo-3p::GFP. تم التحقق من نتائج كل اختبار إجهاد باستخدام خطين أو ثلاثة خطوط مستقلة. تم التأكد من نجاح استئصال عصبونات RIC من خلال غياب فلورة tbh-1p::GFP في السلالة مستأصلة العصبونات RIC، بينما لوحظ تعبير GFP في عصبونات RIC لسلالة التحكم المراسلة tbh-1p::GFP (Supplementary Figure 1).
باستخدام خطوات مقايسة الإجهاد الحراري الموضحة في القسم 3.1، فحصنا بقاء كل من السلالات البرية (WT) والسلالات التي تم فيها استئصال عصبونات RIC تحت إجهاد حراري بقدر 35 °C (الشكل 2D). وباستخدام خطوات تحليل البيانات الموضحة في الأقسام 4.1–4.3، أظهرت النتائج عدم وجود فرق معنوي بين السلالة التي تم فيها استئصال عصبونات RIC ومجموعة التحكم البرية N2 تحت إجهاد حراري بقدر 35 °C (الشكل 2D).
أُجريت جميع النتائج التمثيلية لمقايسات الإجهاد الحراري باستخدام ثلاث مكررات بيولوجية مستقلة نُفذت في أيام مختلفة (الشكل التكميلي 2). عدد الحيوانات (قيمة n الموضحة في تسميات الأشكال) المساهمة في منحنى البقاء الموضح في النتائج التمثيلية والأشكال التكميلية هو العدد المجمع من المكررات التقنية الأربعة في مكرر بيولوجي واحد.
معايرة جرعة إجهاد الشبكة الإندوبلازمية ومقارنة مقاومة إجهاد الشبكة الإندوبلازمية في سلالة استئصال RIC
باستخدام خطوات مقايسة إجهاد الشبكة الإندوبلازمية الموضحة في القسم 3.2، قمنا بقياس بقاء النوع البري (WT) تحت تأثير 25 أو 50 أو 100 أو 200 µg/mL التيونيكاميسين كجرعات متزايدة من إجهاد الشبكة الإندوبلازمية (الشكل 2هـ). وبالمقارنة مع متوسط بقاء على قيد الحياة يبلغ حوالي 20 يومًا في ظروف غير مجهدة فسيولوجيًا (الشكل 2أ)، ويبلغ متوسط بقاء الديدان من النوع البري 10.74 يوماً عند 25 µg/mL، 9.13 أيام عند 50 µg/mL، 9.3 أيام في 100 µg/mL، و8.93 يوماً عند 200 µg/mL تيونيكاميسين (الشكل 2E). ولم تؤدِ زيادة جرعة التونيكاميسين (tunicamycin) إلى تغيير ملحوظ في معدل البقاء على قيد الحياة تحت هذه الجرعات. أما التحليلات الإحصائية و P تُعرض القيم بالتفصيل في جدول تكميلي 2 وشروح الرسوم التوضيحية. وتوفر هذه البيانات معلومات موثوقة للباحثين لاختيار الجرعة المثلى من التونيكاميسين (tunicamycin) في اختبار إجهاد الشبكة الإندوبلازمية.
استخدمنا بعد ذلك 50 µg/mL من التونيكاميسين (tunicamycin)، وهي جرعة متوسطة بين الجرعات المختبرة، كحالة إجهاد للشبكة الإندوبلازمية لتقييم تأثير استئصال عصبونات RIC على البقاء على قيد الحياة مقارنة بالحيوانات من النوع البري (WT). وباستخدام خطوات مقايسة إجهاد الشبكة الإندوبلازمية الموضحة في القسم 3.2، فحصنا بقاء كل من سلالات WT والسلالات التي تم استئصال عصبونات RIC منها تحت تأثير إجهاد الشبكة الإندوبلازمية الناجم عن 50 µg/mL من التونيكاميسين (الشكل 2F). وباستخدام خطوات تحليل البيانات الموضحة في الأقسام 4.1–4.3، أظهر منحنى البقاء للسلالة التي تم استئصال عصبونات RIC منها إزاحة ملحوظة نحو اليمين بالنسبة لضابط WT N2، مما يشير إلى إطالة مدة البقاء تحت إجهاد الشبكة الإندوبلازمية. وتشير هذه النتيجة إلى أن استئصال عصبونات RIC يعزز المقاومة لإجهاد الشبكة الإندوبلازمية (الشكل 2F).
أُجريت جميع النتائج التمثيلية من فحوصات إجهاد الشبكة الإندوبلازمية (ER stress) باستخدام ثلاث مكررات بيولوجية مستقلة نُفذت في أيام مختلفة (الشكل التكميلي 3). أما عدد الحيوانات (قيمة n الموضحة في تسميات الأشكال) التي ساهمت في منحنى البقاء الموضح في النتائج التمثيلية والأشكال التكميلية، فهو العدد المجمع من المكررات التقنية الأربعة في مكرر بيولوجي واحد.
معايرة جرعة الإجهاد الميتوكوندري ومقارنة مقاومة الإجهاد الميتوكوندري في سلالة استئصال RIC
باستخدام خطوات مقايسة الإجهاد الميتوكوندري الموضحة في القسم 3.3، قمنا بقياس بقاء النوع البري (WT) تحت تركيزات 5، أو 10، أو 20، أو 40، أو 80 µg/mL أنتيميسين أ (antimycin A) كجرعات متزايدة من الإجهاد الميتوكوندري (الشكل 2G). وأظهرت منحنيات البقاء للدود من النوع البري (WT) تغيرات ملحوظة بطريقة تعتمد على الجرعة. وبمقارنتها بمتوسط بقاء يبلغ نحو 20 يومًا في حالة عدم التعرض لإجهاد فسيولوجي (الشكل 2أ)، ويبلغ متوسط بقاء الديدان من النوع البري 4.96 يومًا عند 5 µg/mL، ٣٫٧٧ يوماً عند 10 µg/mL، ٢.٦٨ يومًا عند 20 µg/mL، ١.٦٥ يوماً عند 40 µg/mL، و1.4 يومًا في 80 µg/mL أنتيميسين أ (الشكل 2G). والتحليلات الإحصائية و P تُعرض القيم بالتفصيل في الجدول التكميلي 2 وتوضيحات الرسوم البيانية. وتوفر هذه البيانات معلومات موثوقة للباحثين لاختيار جرعة antimycin A والمقياس الزمني الأمثل عند تصميم مقايسة الإجهاد الميتوكوندري. ويمكن للباحثين اختيار 5 µg/mL لتقييم بقاء الديدان على قيد الحياة على مدار 10 أيام تقريباً، أو استخدام تركيزات أعلى من antimycin A للحصول على نتائج البقاء في غضون عدة أيام. يرجى ملاحظة أن التركيزات الأعلى تسرع من حدوث الوفيات، بينما تؤدي التركيزات الأدنى إلى انخفاض تدريجي في معدلات البقاء، مما يسمح بتمييز الفروق الدقيقة بين السلالات بشكل أسهل.
استخدمنا بعد ذلك 5 µg/mL أنتيميسين أ (antimycin A)، والذي أحدث تأثيرًا أكثر انخفاض تدريجي في معدلات البقاء على قيد الحياة بين الجرعات المختبرة، حيث تم تطبيق حالة الإجهاد الميتوكوندري لتقييم تأثير استئصال عصبونات RIC على البقاء مقارنة بالحيوانات من النوع البري (WT). وباستخدام خطوات مقايسة الإجهاد الميتوكوندري الموضحة في القسم 3.3، فحصنا بقاء كل من سلالات النوع البري والسلالات التي خضعت لاستئصال RIC تحت 5 µg/mL الإجهاد الميتوكوندري المستحث بواسطة antimycin A (الشكل 2Hوباستخدام خطوات تحليل البيانات الواردة في الأقسام 4.1-4.3، أظهر منحنى البقاء للسلالة التي تم فيها استئصال عصبونات RIC إزاحة ملحوظة نحو اليمين مقارنة بمجموعة التحكم WT N2، مما يشير إلى إطالة فترة البقاء تحت تأثير الإجهاد الميتوكوندري. وتوحي هذه النتيجة بأن استئصال عصبونات RIC يعزز المقاومة للإجهاد الميتوكوندري.الشكل 2H).
أُجريت جميع النتائج التمثيلية لاختبارات الإجهاد الميتوكوندري باستخدام ثلاث مكررات بيولوجية مستقلة نُفذت في أيام مختلفة (الشكل التكميلي 4). إن عدد الحيوانات (قيمة n الموضحة في تسميات الأشكال) المساهمة في منحنى البقاء الموضح في النتائج التمثيلية والأشكال التكميلية هو العدد المجمع من المكررات التقنية الأربعة في مكرر بيولوجي واحد.
معايرة جرعة الإجهاد التأكسدي ومقارنة مقاومة الإجهاد التأكسدي في سلالة استئصال RIC
باستخدام خطوات مقايسة الإجهاد التأكسدي الموضحة في القسم 3.4، قمنا بقياس بقاء WT تحت تركيزات 2.5 أو 5 أو 10 أو 20 mM من الباراكوات كجرعات متزايدة من الإجهاد التأكسدي (الشكل 2I). وأظهرت منحنيات البقاء لديدان WT تغيرات ملحوظة تعتمد على الجرعة. مقارنة بمتوسط بقاء غير مجهد فسيولوجياً يبلغ حوالي 20 يوماً (الشكل 2A)، كان متوسط بقاء الديدان من النوع البري 4.92 يوماً عند 2.5 mM، و3.81 يوماً عند 5 mM، و2.93 يوماً عند 10 mM، و2.81 يوماً عند 20 mM من الباراكوات (الشكل 2I). تتوفر التحليلات الإحصائية وقيم P بالتفصيل في الجدول التكميلي 2 وشروح الأشكال. وتوفر هذه البيانات معلومات موثوقة للباحثين لاختيار الجرعة المثلى من الباراكوات والمقياس الزمني عند تصميم مقايسة الإجهاد التأكسدي. ويمكن للباحثين اختيار تركيز 2.5 mM لتقييم بقاء الديدان على مدار 10 أيام تقريباً، أو استخدام تركيزات أعلى من الباراكوات للحصول على نتائج البقاء خلال عدة أيام. يلاحظ أن التركيزات الأعلى (10 mM و20 mM) تسرع من الوفيات، بينما تؤدي التركيزات المتوسطة والمنخفضة (2.5 mM و5 mM) إلى انخفاض تدريجي في البقاء، مما يسمح بتمييز الاختلافات الطفيفة بين السلالات بشكل أكثر سهولة.
استخدمنا بعد ذلك 5 mM من الباراكوات (paraquat)، وهي جرعة متوسطة من بين الجرعات المختبرة، كحالة إجهاد تأكسدي لتقييم تأثير استئصال عصبونات RIC على البقاء مقارنة بالحيوانات من النوع البري (WT). وباستخدام خطوات مقايسة الإجهاد التأكسدي الموضحة في القسم 3.4، فحصنا بقاء كل من السلالات البرية (WT) والسلالات التي استؤصلت منها عصبونات RIC تحت تأثير الإجهاد التأكسدي الناجم عن 5 mM من الباراكوات (الشكل 2J). وباستخدام خطوات تحليل البيانات الموضحة في الأقسام 4.1-4.3، أظهرت النتائج عدم وجود فرق معنوي بين السلالة التي استؤصلت منها عصبونات RIC ومجموعة التحكم من النوع البري N2 تحت تأثير الإجهاد التأكسدي الناجم عن 5 mM من الباراكوات (الشكل 2J).
أُجريت جميع النتائج التمثيلية لمقايسات الإجهاد التأكسدي باستخدام ثلاث مكررات بيولوجية مستقلة نُفذت في أيام مختلفة (الشكل التكميلي 5). إن عدد الحيوانات (قيمة n الموضحة في شروح الأشكال) المساهمة في منحنى البقاء الموضح في النتائج التمثيلية والأشكال التكميلية هو العدد المجمع من المكررات التقنية الأربعة في مكرر بيولوجي واحد.
استكشاف الأخطاء وإصلاحها
تتمثل إحدى المشكلات المتكررة في مقايسات الإجهاد التأكسدي المستحث بواسطة الباراكوات (paraquat) في هروب الديدان من أطباق الآجار، مما يؤدي إلى فقدان الحيوانات وانخفاض عدد الديدان المتاحة للتحليل. يمكن إضافة حاجز من حمض البالمتيك أو "سياج" آخر إلى أطباق المقايسة لتثبيط سلوك الهروب هذا جزئياً46,47، على الرغم من أن التحسن يكون طفيفاً ولا يقضي على المشكلة تماماً. لم يُلاحظ أي فرق معنوي في صحة وعمر C. elegans بعد المعالجة بحمض البالمتيك48. يعمل حاجز حمض البالمتيك كـ "سياج" طارد على أطباق NGM لمنع C. elegans من الهروب بسبب الإجهاد أو التجويع أو مسببات الأمراض. لتقليل هروب الديدان، ضع 30 µL من حمض البالمتيك بتركيز 10 mg/mL في الإيثانول (أضف 0.5 g من حمض البالمتيك إلى 50 mL من EtOH بنسبة 100%) على حافة طبق المقايسة مقاس 35 mm، ثم حرك الطبق بلطف لتشكيل حلقة مستمرة. وبمجرد تبخر الإيثانول، تعمل حلقة حمض البالمتيك كحاجز فيزيائي وكيميائي لتقليل هروب الديدان. أما الديدان التي تموت أثناء ملامستها لحلقة حمض البالمتيك فيتم استبعادها من تحليل البقاء.
تنبيه: يجب التعامل مع حمض البالميتيك ومحلوله باستخدام معدات الوقاية الشخصية المخبرية المناسبة، بما في ذلك القفازات، ومعطف المختبر، وواقي العينين، كما يجب توخي الحذر لتجنب ملامسته للجلد والعينين.
توافر البيانات
تتوفر بيانات البقاء التي يستند إليها الشكل 2 والأشكال التكميلية، بما في ذلك بيانات جميع المكررات البيولوجية والنتائج الإحصائية، في الأشكال التكميلية 1-5، والجداول التكميلية 1-2 والملف التكميلي 1.
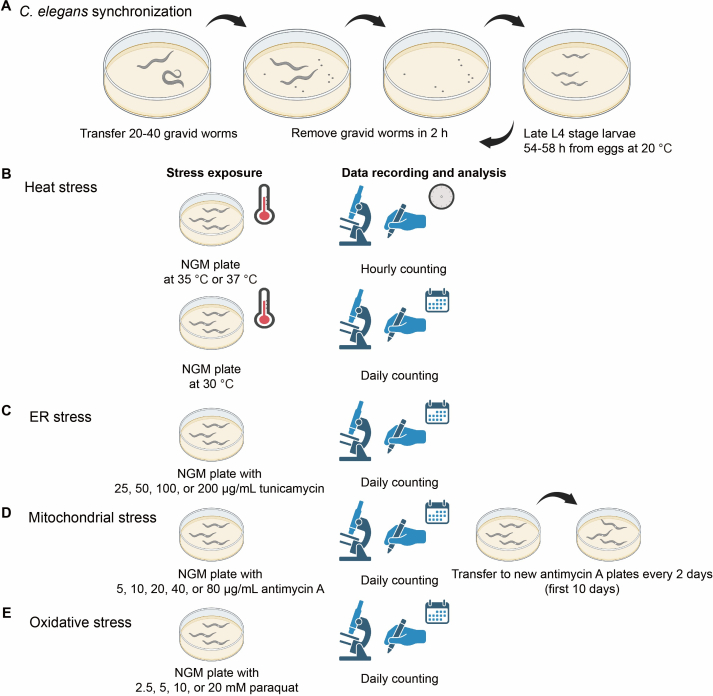
الشكل 1: مخطط سير عمل فحوصات الإجهاد. (أ) يتم الحصول على ديدان متزامنة عن طريق جمع البيض الذي تضعه الديدان الحاملة خلال فترة زمنية مدتها 2-h. تُستخدم الديدان المتزامنة في جميع فحوصات الإجهاد، وتُنقل إلى أطباق أو ظروف الإجهاد في مرحلة L4 المتأخرة بعد 54-58 h من النمو من البيض عند 20 °C. (ب) في فحص الإجهاد الحراري، تُنقل الديدان المتزامنة إلى أطباق NGM في حاضنة عند 35 °C أو 37 °C، ويتم إحصاء الديدان الميتة كل ساعة. أما بالنسبة لفحص الإجهاد الحراري في حاضنة عند 30 °C، فيتم إحصاء الديدان الميتة يومياً. (ج) في فحص إجهاد الشبكة الإندوبلازمية (ER)، تُنقل الديدان المتزامنة إلى أطباق NGM تحتوي على 25 أو 50 أو 100 أو 200 µg/mL من tunicamycin، ويتم إحصاء الديدان الميتة يومياً. (د) في فحص إجهاد الميتوكوندريا، تُنقل الديدان المتزامنة إلى أطباق NGM تحتوي على 5 أو 10 أو 20 أو 40 أو 80 µg/mL من antimycin A، ويُقيم البقاء على قيد الحياة من خلال الإحصاء اليومي. ولمنع التداخل من الذرية، تُنقل الديدان إلى أطباق جديدة تحتوي على antimycin A كل يومين خلال الأيام العشرة الأولى من الفحص. (هـ) في فحص الإجهاد التأكسدي، تُنقل الديدان المتزامنة إلى أطباق NGM تحتوي على 2.5 أو 5 أو 10 أو 20 mM من paraquat، ويُقيم البقاء على قيد الحياة من خلال الإحصاء اليومي. يتم تقييم مقاومة الإجهاد من خلال مقارنة منحنيات بقاء Kaplan–Meier الناتجة عن كل فحص. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
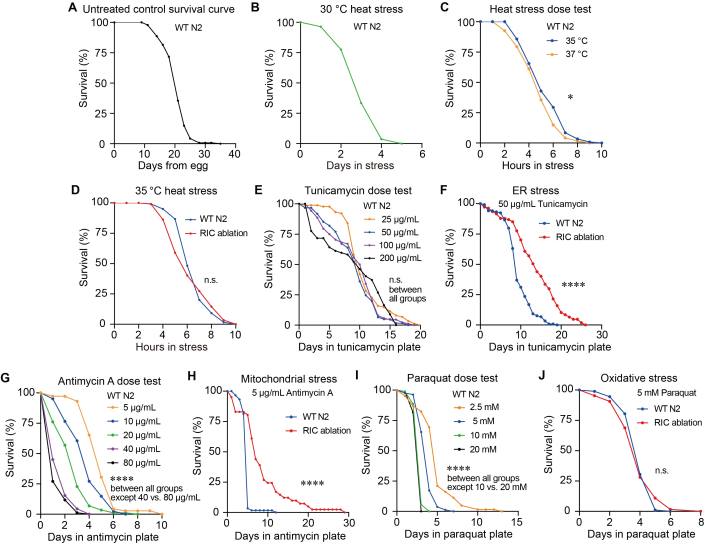
الشكل 2: معايرة جرعات الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد الميتوكوندري، والإجهاد التأكسدي، ومقارنة مقاومة الإجهاد في سلالة استئصال عصبونات RIC . (A) منحنى بقاء كابلان-ماير (Kaplan–Meier) ممثّل لسلالة WT N2 تحت ظروف عدم الإجهاد (n = 141، متوسط البقاء = 20.67 يومًا). (B) منحنى بقاء كابلان-ماير ممثّل لسلالة WT N2 تحت إجهاد حراري عند 30 °C (n = 111، متوسط البقاء = 3.11 يومًا). (C) منحنى بقاء كابلان-ماير ممثّل لسلالة WT N2 تحت إجهاد حراري عند 35 °C و 37 °C (n = 119, 121)؛ اختبار log-rank، القيمة P = 0.0244، وتشير * إلى P < 0.05. (D) منحنى بقاء كابلان-ماير ممثّل لسلالة WT N2 والسلالة المستأصلة عصبونات RIC تحت إجهاد حراري عند 35 °C (n = 117, 120)؛ اختبار log-rank، القيمة P = 0.4972، وتشير n.s. إلى عدم وجود فرق معنوي. استُخدمت سلالة WT N2 كمجموعة ضابطة. (E) منحنيات بقاء استجابة الجرعة لسلالة WT N2 تحت تركيزات متزايدة من العلاج بالتونيكاميسين (tunicamycin) (n = 88, 61, 88, 67)؛ اختبار log-rank، القيمة P = 0.6472 (25 µg/mL مقابل 100 µg/mL)، و P = 0.1473 (25 µg/mL مقابل 50 µg/mL)، و P = 0.6581 (50 µg/mL مقابل 200 µg/mL)، و P = 1 (25 µg/mL مقابل 200 µg/mL؛ 50 µg/mL مقابل 100 µg/mL؛ 100 µg/mL مقابل 200 µg/mL)، وتشير n.s. إلى عدم وجود فرق معنوي. (F) منحنى بقاء كابلان-ماير ممثّل لسلالة WT N2 والسلالة المستأصلة عصبونات RIC تحت إجهاد الشبكة الإندوبلازمية المستحث بالتونيكاميسين بتركيز 50 µg/mL (n = 119, 107)؛ اختبار log-rank، وتشير **** إلى P < 0.0001. (G) منحنيات بقاء كابلان-ماير ممثّلة لسلالة WT N2 المعالجة بتركيزات متزايدة من أنtimycin A (n =72, 81, 88, 91, 85)؛ اختبار log-rank، القيمة P = 0.000038 (5 µg/mL مقابل 10 µg/mL)، و P = 0.00002 (10 µg/mL مقابل 20 µg/mL)، و P = 1.60 × 10⁻8 (20 µg/mL مقابل 40 µg/mL)، و P < 0.0001 (5 µg/mL مقابل 20 µg/mL؛ 5 µg/mL مقابل 40 µg/mL؛ 5 µg/mL مقابل 80 µg/mL؛ 10 µg/mL مقابل 40 µg/mL؛ 10 µg/mL مقابل 80 µg/mL؛ أو 20 µg/mL مقابل 80 µg/mL)، و P = 0.189 (40 µg/mL مقابل 80 µg/mL)، وتشير **** إلى P < 0.0001. (H) منحنى بقاء كابلان-ماير ممثّل لسلالة WT N2 والسلالة المستأصلة عصبونات RIC تحت الإجهاد الميتوكوندري المستحث بـ antimycin A بتركيز 5 µg/mL (n = 59, 41)؛ اختبار log-rank، القيمة P = 3.2 × 10⁻9، وتشير **** إلى P < 0.0001. (I) منحنيات بقاء كابلان-ماير ممثّلة لسلالة WT N2 تحت جرعات مختلفة من الباراكوات (paraquat) (n = 62, 81, 88, 93)؛ اختبار log-rank، القيمة P = 1.80 × 10⁻7 (2.5 mM مقابل 5 mM)، و P < 0.0001 (2.5 mM مقابل 10 mM؛ 2.5 mM مقابل 20 mM؛ 5 mM مقابل 10 mM؛ 5 mM مقابل 20 mM)، و P = 0.1445 (10 mM مقابل 20 mM)، وتشير **** إلى P < 0.0001. (J) منحنيات بقاء كابلان-ماير ممثّلة لسلالة WT N2 والسلالة المستأصلة عصبونات RIC تحت الإجهاد التأكسدي المستحث بالباراكوات بتركيز 5 mM (n = 92, 64)؛ اختبار log-rank، القيمة P = 0.9817، وتشير n.s. إلى عدم وجود فرق معنوي. أُجريت جميع التجارب باستخدام ثلاث مكررات بيولوجية مستقلة. تظهر في هذا الشكل النتائج الممثّلة من مكرر بيولوجي واحد. يتكون كل مكرر بيولوجي من أربعة أطباق مكررات تقنية تحتوي على الديدان. عدد الحيوانات (n) المساهمة في منحنى البقاء في هذا الشكل هو العدد المجمع من المكررات التقنية الأربعة في مكرر بيولوجي واحد. حُللت المكررات البيولوجية المستقلة بشكل منفصل بدلاً من تجميعها وعُرضت كمجموعات بيانات فردية في الشكل التكميلي 2–5. تم تقييم المعنوية باستخدام اختبار log-rank لمقارنة توزيعات البقاء. قيم P الإحصائية التفصيلية، ومتوسط البقاء، والخطأ المعياري (S. E.) بين المكررات التقنية مدرجة في الجدول التكميلي 2. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: غياب تألق tbh-1p::GFP في السلالة التي تم فيها استئصال عصبونات RIC، بينما لوحظ تعبير GFP في عصبونات RIC لسلالة التحكم المراسلة tbh-1p::GFP. (A) صور فلورية للسلالة التي تم فيها استئصال عصبونات RIC tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP وسلالة التحكم المراسلة tbh-1p::GFP رقم OH16150 tbh-1p::GFP; tdc-1p::mCherry. تم تصوير الديدان في المرحلة المتأخرة L4 باستخدام استثارة بطول موجي 488 nm مع زمن تعريض 800 ms لقناة GFP وزمن تعريض 176 ms لقناة المجال المضيء. تشير رؤوس السهام الصفراء إلى موقع عصبونات RIC في سلالة التحكم المراسلة tbh-1p::GFP أو الموقع المتوقع لعصبونات RIC الغائبة في السلالة التي تم فيها استئصال عصبونات RIC. لم يتم اكتشاف إشارة tbh-1p::GFP في موقع عصبونات RIC في السلالة التي تم فيها استئصال عصبونات RIC، بينما لوحظت إشارة tbh-1p::GFP في عصبونات RIC لسلالة التحكم المراسلة tbh-1p::GFP رقم OH16150. يعود تألق عضلات جدار الجسم في السلالة التي تم فيها استئصال عصبونات RIC إلى myo-3p::GFP، وهو مؤشر حقن مشترك. (A) العدد n = 14 لسلالة OH16150؛ و n = 20 للسلالة التي تم فيها استئصال عصبونات RIC. (B, C) نتائج ممثلة من مكررين بيولوجيين آخرين. تم تصوير الديدان في المرحلة المتأخرة L4 باستخدام استثارة بطول موجي 488 nm مع زمن تعريض 1007 ms (B) أو 1998 ms (C) لقناة GFP وزمن تعريض 176 ms (B و C) لقناة المجال المضيء. (B) العدد n = 8 لسلالة OH16150؛ و n = 17 للسلالة التي تم فيها استئصال عصبونات RIC. (C) العدد n = 14 لسلالة OH16150؛ و n = 13 للسلالة التي تم فيها استئصال عصبونات RIC . يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 2: مكررات بيولوجية لمنحنيات البقاء على قيد الحياة في ظروف غير مجهدة أو تحت الإجهاد الحراري. (A، B) منحنيات بقاء كابلان-ماير من مكررين بيولوجيين مستقلين في ظروف غير مجهدة. (A) n = 123، متوسط البقاء = 20.52 days؛ (B) n = 130، متوسط البقاء = 22.74 days. (C، D) منحنيات بقاء كابلان-ماير لسلالة WT N2 تحت إجهاد حراري عند 30 °C. البيانات مستمدة من مكررين بيولوجيين مستقلين. (C) n = 130، متوسط البقاء = 3.72 days. (D) n = 98، متوسط البقاء = 3.77 days. (E، F) منحنيات بقاء كابلان-ماير تحت ظروف إجهاد حراري عند 35 °C أو 37 °C. البيانات مستمدة من مكررين بيولوجيين مستقلين. (E) n = 118, 121؛ اختبار log-rank، P = 0.0409، تشير * إلى P < 0.05، (F) n = 122, 120؛ اختبار log-rank، P = 0.0251، تشير * إلى P < 0.05. (G، H) منحنيات بقاء كابلان-ماير لسلالات WT N2 والسلالات التي تم استئصال عصبونات RIC منها تحت ظروف إجهاد حراري عند 35 °C. البيانات مستمدة من مكررين بيولوجيين مستقلين. (G) n = 79, 76؛ اختبار log-rank، P = 0.2217، تشير n.s. إلى عدم وجود فرق معنوي. (H) n = 77, 81؛ اختبار log-rank، P = 0.1881، تشير n.s. إلى عدم وجود فرق معنوي. تم تقييم الدلالة الإحصائية باستخدام اختبار log-rank لمقارنة توزيعات البقاء. تتوفر قيم P الإحصائية التفصيلية ، ومتوسط البقاء، والخطأ المعياري S. E. بين المكررات التقنية في الجدول التكميلي 2. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 3: المكررات البيولوجية لمنحنيات البقاء تحت ظروف إجهاد الشبكة الإندوبلازمية (ER stress). (A، B) منحنيات بقاء Kaplan-Meier لسلالة WT N2 تحت تركيزات مختلفة من المعالجة بالتونيكاميسين (tunicamycin). البيانات مأخوذة من مكررين بيولوجيين مستقلين. (A) n = 110, 102, 100, 96؛ (B) n = 88, 77, 75, 69. قيم P الإحصائية بين المجموعات المختلفة (A و B) موضحة في الجدول التكميلي 2. (C، D) منحنيات بقاء Kaplan-Meier لسلالة WT N2 والسلالة التي تم استئصال عصبونات RIC منها تحت ظروف إجهاد الشبكة الإندوبلازمية المستحث بـ 50 µg/mL من التونيكاميسين. البيانات مأخوذة من مكررين بيولوجيين مستقلين. (C) n = 104, 55؛ اختبار log-rank، P = 0.012، تشير * إلى P < 0.05، (D) n = 85, 109؛ اختبار log-rank، P = 0.0001، تشير *** إلى P < 0.001. تم تقييم الدلالة باستخدام اختبار log-rank لمقارنة توزيعات البقاء. قيم P الإحصائية التفصيلية، ومتوسط البقاء، والخطأ المعياري (S. E.) بين المكررات التقنية مدرجة في الجدول التكميلي 2. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 4: مكررات بيولوجية لمنحنيات البقاء على قيد الحياة في ظل ظروف الإجهاد الميتوكوندري. (A، B) منحنيات كابلان-ماير للبقاء على قيد الحياة لسلالة WT N2 تحت تركيزات مختلفة من العلاج بـ antimycin A. البيانات مستمدة من مكررين بيولوجيين مستقلين. (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. قيم P الإحصائية بين المجموعات المختلفة (A و B) موضحة في الجدول التكميلي 2. (C، D) منحنيات كابلان-ماير للبقاء على قيد الحياة لسلالة WT N2 والسلالة التي تم استئصال عصبونات RIC منها تحت الإجهاد الميتوكوندري المستحث بواسطة antimycin A. البيانات مستمدة من مكررين بيولوجيين مستقلين. (C) n = 105, 78؛ اختبار log-rank، P = 0.000004، وتشير **** إلى P < 0.0001. (D) n = 89, 73؛ اختبار log-rank، وتشير **** إلى P < 0.0001. تم تقييم الدلالة باستخدام اختبار log-rank لمقارنة توزيعات البقاء على قيد الحياة. قيم P الإحصائية التفصيلية، ومتوسط البقاء، والخطأ المعياري S. E. بين المكررات التقنية مدرجة في الجدول التكميلي 2. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 5: المكررات البيولوجية لمنحنيات البقاء تحت ظروف الإجهاد التأكسدي. (A، B) منحنيات بقاء كابلان-ماير لسلالة WT N2 تحت تركيزات مختلفة من المعالجة بالباراكوات. البيانات مستمدة من مكررين بيولوجيين مستقلين. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. قيم P الإحصائية بين المجموعات المختلفة (A و B) موضحة في الجدول التكميلي 2. (C، D) منحنيات بقاء كابلان-ماير لسلالة WT N2 والسلالة التي تم استئصال عصبونات RIC منها تحت ظروف الإجهاد التأكسدي المستحث بـ 5 mM من الباراكوات. البيانات مستمدة من مكررين بيولوجيين مستقلين. (C) n = 87, 82؛ اختبار log-rank، P = 0.2629، وتشير n.s. إلى عدم وجود فرق معنوي. (D) n = 116, 118؛ اختبار log-rank، P = 0.1184، وتشير n.s. إلى عدم وجود فرق معنوي. تم تقييم الدلالة الإحصائية باستخدام اختبار log-rank لمقارنة توزيعات البقاء. قيم P الإحصائية التفصيلية، ومتوسط البقاء، والخطأ المعياري S. E. بين المكررات التقنية مدرجة في الجدول التكميلي 2. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 1: ملخص لأعداد الديدان المدرجة في جميع منحنيات البقاء. يلخص الجدول العدد الأولي للديدان وأعداد الديدان المتمزقة، والمحفوظة في أكياس، والمستبعدة. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 2: تحليلات إحصائية مفصلة لجميع منحنيات البقاء على قيد الحياة، بما في ذلك قيم P، ومتوسط البقاء، والخطأ المعياري S. E. يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 1: البيانات الداعمة لنتائج هذه الدراسة.
يتضمن التحقق من النجاح في استئصال عصبونات RIC ونتائج جميع المكررات البيولوجية التي استندت إليها البيانات المعروضة في الأشكال الرئيسية. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
لقد وصفنا هنا خطوات معيارية لإجراء مقاييس إجهاد قابلة للتكرار تحت ظروف الإجهاد الحراري، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد الميتوكوندري، والإجهاد التأكسدي في ديدان C. elegans (الشكل 1). وقد قمنا بفحص تأثير مجموعة من الجرعات المتزايدة من جميع عوامل الإجهاد الأربعة على بقاء الديدان من النوع البري WT (الشكل 2). كما قدمنا مثالاً على استقصاء دور عصبون بيني في مقاومة الإجهاد ضد جميع عوامل الإجهاد الأربعة باستخدام سلالة استئصال عصبوني (الشكل 2).
للتطبيق الناجح لبروتوكول مقايسة الإجهاد المعروض هنا، يجب مراعاة عدة اعتبارات رئيسية في العملية. نظرًا لوجود تباين بين المختبرات ناتج عن اختلافات تشمل مسحوق الآجار، والوسط الغذائي، ودرجة الحرارة المحيطة، والرطوبة، يُوصى بمعايرة تركيز كل إجهاد أو مركب محفز للإجهاد باتباع خطوات المعايرة الموضحة في قسمي البروتوكول والنتائج. يجب أن يؤدي شرط الإجهاد المناسب إلى استجابة بقاء متوسطة وقابلة للتكرار في الديدان الضابطة من النوع البري، مما يسمح بنطاق ديناميكي كافٍ للكشف عن كل من زيادة ونقص مقاومة الإجهاد. وينبغي تجنب الظروف التي تؤدي إلى بقاء شبه كامل أو فناء شبه كامل. بعد ذلك، من الضروري التأكد من تزامنية الديدان في نفس مرحلة النمو لجميع المكررات البيولوجية والتقنية. يمكن تحقيق تزامنية الديدان باستخدام الإجراء الموضح في الأقسام 2.1–2.3. ويُوصى بالتزامنية في مرحلة L4 المتأخرة. إن بدء مقايسات الإجهاد في مرحلة L4 ممارسة راسخة في مجال أبحاث الاستجابة للإجهاد في C. elegans، وقد استخدمت دراسات عديدة حيوانات متزامنة في مرحلة L4 لمقايسات مقاومة الإجهاد التأكسدي42، والحراري 40,43، وغيرها من مقايسات الإجهاد35. يضمن البدء في مرحلة L4 التزامنية النمائية مع تقليل التباين الناتج عن الاختلافات في عمر البالغين والحالة التناسلية، بما في ذلك بدء إنتاج البيض واحتجاز الأجنة، وكلاهما يمكن أن يؤثر على قياسات مقاومة الإجهاد12,37,38,40. ونظرًا لأن جميع المجموعات التجريبية في دراستنا كانت متزامنة وعولجت بشكل متماثل، فإن هذا النهج يوفر أساسًا متسقًا ومناسبًا لمقارنة مقاومة الإجهاد. وأخيرًا، إذا كانت الديدان جائعة أو مجهدة قبل بدء المقايسة، فيجب استعادة نسلها لعدة أجيال تحت ظروف تغذية غير مجهدة قبل استخدامها كديدان حاملة لإنتاج نسل متزامن لمقايسات الإجهاد.
قد ينشأ التباين بين التجارب في المكررات البيولوجية المستقلة نتيجة الاختلافات في تحضير الأطباق وتخزينها، بما في ذلك مدة تخزين الأطباق التي تحتوي على المركبات المحفزة للإجهاد عند 4 °C وتوقيت استزراع بكتيريا OP50. ولتحسين قابلية التكرار عبر التجارب التي تُجرى في أيام مختلفة، يجب توحيد خطوات تحضير الأطباق الحرجة وفقاً للبروتوكول الموضح لتحضير أطباق NGM في القسم 1.1، وأطباق إجهاد الشبكة الإندوبلازمية المحفزة بالتونيكامايسين في القسم 3.2.1، وأطباق الإجهاد الميتوكوندري المحفزة بالأنتيمايسين A في القسم 3.3.1، وأطباق الإجهاد التأكسدي المحفزة بالباراكوات في القسم 3.4.1. وتحديداً، يجب تجفيف أطباق الآجار في درجة حرارة الغرفة لمدة 24 h تقريباً بعد الصب، ثم استزراع بكتيريا OP50 بمجرد تصلب الآجار تماماً. ويجب ترك أطباق NGM المستزرعة بـ OP50 لتجف في درجة حرارة الغرفة لمدة 24 h إضافية قبل تخزينها عند 4 °C. وقد يختلف وقت التجفيف الأمثل اعتماداً على استخدام أطباق مهواة أو غير مهواة والظروف البيئية المحلية، مثل درجة الحرارة والرطوبة. لذا، يجب على كل مختبر تحسين هذه الخطوة بما يتناسب مع ظروفه الخاصة والحفاظ على وقت تجفيف ثابت عبر جميع المكررات البيولوجية المستقلة لضمان قابلية التكرار. كما يجب استخدام أطباق اختبار الإجهاد في غضون أسبوع واحد من التحضير لتقليل تحلل المركبات المحفزة للإجهاد والنمو البكتيري المفرط، وكلاهما قد يؤثر على اتساق الاختبار.
أظهر هذا البروتوكول أيضًا مثالاً لاستقصاء دور عصبون بيني في الاستجابة للإجهاد تجاه جميع المجهدات الأربعة باستخدام سلالة استئصال عصبي (الشكل 2). يمكن استخدام محفز جين يتم التعبير عنه تحديداً في عصبون معين لدفع التعبير عن caspase-3 واستئصال العصبون المستهدف. هنا استخدمنا محفز tbh-1، الذي يدفع التعبير الجيني تحديداً في عصبونات RIC، لاستئصال عصبونات RIC. وقد تم التحقق من محفز tbh-1 على نطاق واسع للتلاعب الجيني الموجه نحو RIC، ويُستخدم بشكل روتيني للتعبير النوعي للخلايا، والإنقاذ، وتصوير الكالسيوم، وإسكات العصبونات45,49,50. وتماشياً مع التوصيفات المسجلة لـ tbh-1، لاحظنا أن التعبير عن tbh-1p::GFP كان مقتصرًا على عصبونات RIC ولم نرصد فلورة في أنسجة أخرى (الشكل التكميلي 1). لم نفحص بشكل محدد حجم الحضنة أو مورفولوجيا الخط الجرثومي في السلالة التي استؤصلت منها عصبونات RIC؛ ومع ذلك، لم نلاحظ عيوباً فسيولوجية واضحة في السلالة التي استؤصلت منها عصبونات RIC. وقد أفيد بأن مراسل tbh-1 يظهر تعبيراً إضافياً في خلايا الغمد الغددي الجسدية، وهي خلايا جسدية في الجهاز التناسلي51,52. ورغم أننا لا نستطيع استبعاد احتمالية وجود تعبير منخفض المستوى خارج عصبونات RIC تماماً، إلا أننا نرى أنه من غير المرجح أن يكون التعبير عن tbh-1 خارج عصبونات RIC هو المسؤول عن زيادة مقاومة الإجهاد الملحوظة في الحيوانات التي استؤصلت منها عصبونات RIC. وبالرغم من أن هذه الطريقة راسخة جيداً49,50، إلا أنها محدودة باحتمالية التعبير في خلايا خارج العصبون المستهدف. لذا تبرز الحاجة إلى منهجيات أخرى لتأكيد دور العصبون، على سبيل المثال، مراقبة نشاط العصبون استجابةً للمجهدات، أو تقييم دور الناقلات العصبية التي يفرزها هذا العصبون في اختبارات الإجهاد.
C. elegans تُعد مقاييس البقاء أدوات قوية لقياس مقاومة الإجهاد بسبب الـ قصر العمر النسبي للديدان (حوالي 20 إلى 30 يوماً، الشكل 2) والنفوق السريع الناجم عن عوامل إجهاد متعددة، والذي يحدث عادةً خلال ساعات إلى أيام (الشكل 2). ومع ذلك، فإن أحد قصور اختبارات البقاء هو اعتمادها على نقطة نهاية ثنائية (حي/ميت)، وبالتالي فهي لا ترصد التدهور الفسيولوجي التدريجي الذي يحدث أثناء التعرض للإجهاد. ويمكن للاختبارات التكميلية، مثل اختبارات التخبط (thrashing assays) أو قياسات الحركة الآلية (السرعة) التي تُجرى في نقاط زمنية متعددة، أن توفر معلومات إضافية حول الفقدان التدريجي للوظيفة العصبية العضلية أثناء الإجهاد. وثمة قصور آخر يتمثل في أن الوفاة تُحدد بناءً على غياب الاستجابة للتحفيز الفيزيائي اللطيف، وهو ما قد يؤدي إلى تقدير ناقص للحيوية في الحيوانات التي تعاني من ضعف شديد في الحركة. بالإضافة إلى ذلك، يتسبب التقييم اليدوي في حدوث تباين يعتمد على المراقب وتحيز محتمل. ولتقليل هذه التأثيرات، يجب أن يقوم الباحث نفسه بجميع عمليات التقييم ضمن المكرر البيولوجي المستقل، على أن يكون هذا الباحث مُعْمى عن النمط الجيني والظروف التجريبية. كما تعد ظروف التقييم المتسقة، بما في ذلك استخدام نفس تكبير المجهر وإعدادات الإضاءة عند كل نقطة زمنية، مهمة لتقليل التباين بين الأطباق وعبر التجارب. وفي النتائج التمثيلية، عرضنا مثالاً أظهرت فيه السلالة التي استؤصلت منها عصبونات RIC زيادة في مقاومة الإجهاد الناتج عن إجهاد الشبكة الإندوبلازمية (ER) وإجهاد الميتوكوندريا، ولكن ليس الإجهاد الحراري والإجهاد التأكسدي، مقارنة بالديدان من النوع البري (الشكل 2إن وجود فرق في معدلات البقاء تحت تأثير اثنين من أربعة عوامل إجهاد لا يثبت بحد ذاته وجود دور محدد للمسار في العصبون؛ لذا فإن الاستنتاج البيولوجي الوارد في هذه المخطوطة يُقدم كبرهان على المنهجية والملاحظة وليس كادعاء ميكانيكي.
بالإضافة إلى اختبارات البقاء تحت الضغط الموصوفة هنا، تم تطوير العديد من المنصات المؤتمتة لقياس بقاء C. elegans. إذ يعمل التقييم المؤتمت على زيادة الإنتاجية بشكل كبير، ويتيح المراقبة المستمرة أو عالية التردد، ويقلل من التحيز المعتمد على المراقب والجهد المرتبط بالتقييم اليدوي53,54,55. وتعد هذه الأنظمة مفيدة بشكل خاص للفحوصات الجينية أو الكيميائية واسعة النطاق. ومع ذلك، تستنتج معظم الطرق المؤتمتة حدوث الوفاة من توقف الحركة، وهو ما قد يؤدي إلى التصنيف الخاطئ للديدان الساكنة أو التي تعاني من ضعف شديد في الحركة تحت تأثير الضغط، وذلك اعتماداً على خوارزمية التصوير وعتبة الكشف. كما يمكن أن يتأثر الكشف المؤتمت بالعوامل البيئية، بما في ذلك درجة الحرارة، والتكثيف، والتلوث الفطري أو البكتيري، والاختلافات في ظروف الزراعة، والتي قد تتداخل جميعها مع عملية الكشف عن الديدان وتؤثر على قياسات البقاء. في المقابل، يتيح التقييم اليدوي للمجرب تحديد الأنماط الظاهرية غير الطبيعية، مثل التكييس (bagging)، أو الفقس الداخلي، أو الحيوانات الممزقة، والتي قد تتطلب معايير تقييم أو استبعاد محددة. وعلى الرغم من أن التقييم اليدوي يتطلب جهداً أكبر وهو عرضة للتفاوت المرتبط بالمراقب، إلا أنه يمكن تقليل هذه القيود من خلال التقييم التعموي، ومعايير التقييم الموحدة، والتقييم المتسق من قبل الباحث نفسه. وبناءً على ذلك، فإن اختبارات البقاء اليدوية والمؤتمتة لكل منها مزايا وقيود متميزة، ويجب أن يتم اختيار الطريقة بناءً على الأهداف التجريبية، والإنتاجية المطلوبة، وطبيعة نموذج الإجهاد.
توفر الطرق الموصوفة هنا، عند النظر إليها مجتمعة، إطاراً معيارياً وقابلاً للتكرار لتقييم استجابات C. elegans لضغوط بيئية متعددة، بما في ذلك الإجهاد الحراري، وإجهاد الميتوكوندريا، وإجهاد الشبكة الإندوبلازمية (ER)، والإجهاد التأكسدي. ويعد تقييم المقاومة لأنواع مختلفة من الضغوط أمراً ضرورياً لأن الاضطرابات الجينية أو الفسيولوجية قد تعزز المقاومة لنوع واحد من الإجهاد بينما تزيد من الحساسية تجاه نوع آخر، مما يكشف عن آليات التكيف مع الإجهاد، سواء كانت خاصة بمؤثر معين أو مشتركة. تمكن هذه المقاييس من إجراء مقارنات كمية للمقاومة للإجهاد عبر أنماط جينية وظروف تجريبية مختلفة، ويمكن تطبيقها بسهولة لبحث أدوار الجينات، والعصبونات، والمسارات الأيضية في الحفاظ على المقاومة للإجهاد والتوازن الفسيولوجي. وعلى نطاق أوسع، توفر هذه الطرق منصة قوية لتحديد الآليات التي تعزز صحة الكائن الحي وبقائه في ظل الظروف البيئية القاسية.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
شكر وتقدير
تم دعم الأبحاث الواردة في هذا المنشور من قبل شبكة كانساس لأفكار التميز في البحوث الطبية الحيوية (K-INBRE, P20 GM103418)، ومركز التميز في البحوث الطبية الحيوية (COBRE, P20 GM113109)، ومركز جونسون لأبحاث السرطان بجامعة ولاية كانساس (جائزة توسيع أبحاث السرطان) الممنوحة لـ S.H. من حيث التمويل.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| تونيكاميسين | Sigma-Aldrich | T7765 | محفز إجهاد الشبكة الإندوبلازمية |
| أنتيميسين أ | Sigma-Aldrich | A8674 | محفز الإجهاد الميتوكوندري |
| ميثيل فيولوجين ثنائي الكلوريد المميأ (باراكوات) | Sigma-Aldrich | 856177 | محفز الإجهاد التأكسدي |
| حمض البالمتيك | MP Biomedicals, LLC | 100905 | كبت C. elegans هروب سلوك |
| كوليسترول | MP Biomedicals, LLC | 101382 | لـ NGM |
| كلوريد الكالسيوم | Thermo Fisher Scientific Inc. | C79-500 | لوسط NGM |
| كبريتات المغنيسيوم اللامائية | Mallinckrodt Pharmaceuticals plc | 6070 | لوسط NGM |
| آغار | شركة Apex Chemicals المحدودة | 20-273 | من أجل NGM |
| ببتون | شركة Apex Chemicals المحدودة | 20-260 | لأجل NGM |
| فوسفات البوتاسيوم أحادية القاعدة | Thermo Fisher Scientific Inc. | P285-3 | لـ NGM |
| كلوريد الصوديوم | Thermo Fisher Scientific Inc. | S640-3 | من أجل NGM |
| فوسفات البوتاسيوم ثنائية القاعدة | Allied Chemical، قسم الكيماويات العامة | رمز 2131 | من أجل NGM |
| أطباق بتري (35 مم) | Genesee Scientific, LLC | 32-103 | أطباق مقايسة الإجهاد |
| أطباق بتري (60 مم) | Genesee Scientific, LLC | 32-105 | صيانة C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| هزاز حضانة مبرد New Brunswick Scientific (Eppendorf) C24KC | Eppendorf / New Brunswick Scientific | C24KC | 37 °C حضّانة |
| DigiTherm® حضانة تسخين وتبريد سعة 38 لترًا | Tritech Research Inc. | DT2-MP-47L | 35 °C حضّانة |
| حضانة درجات الحرارة المنخفضة Isotemp من Fisher Scientific | Fisher Scientific | ١٤٦ هـ | 30 °C حضّانة |
| الحاضنة المبردة SHELab SRI20P | شركة شيلدون للتصنيع (Sheldon Manufacturing Inc.) | SRI20P | 20 °C حضّانة |
| المجهر المجسم البحثي Leica M165 FC | Leica Microsystems | M165 FC | مجهر للتصوير |
| المجهر الاستريو الزومي ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | مجهر لمناولة الديدان وتقييمها |
| مايكروسوفت إكسل 2019 | Microsoft Corporation | رسم البيانات الخام | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | تصور البيانات | |
| أواسيس 2 (OASIS 2) | POSTECH، معرف PubMed: 27528229 | التحليل الإحصائي | |
| BioRender | Science Suite Inc. | توضيح تخطيطي | |
| ImageJ | المعاهد الوطنية للصحة (NIH) | معالجة الصور | |
| Adobe Illustrator 2021 | Adobe Inc. | تجميع الأشكال التنسيق | |
| النمط البري | مركز جينات Caenorhabditis، CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | صنع منزلي | الاستئصال بالتيار الراديوي المتناوب (RIC ablation) | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. يتم وسم عصبونات RIC بكل من GFP وmCherry | مركز جينات Caenorhabditis، CGC | OH16150 |
المراجع
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً