يظهر هذا البروتوكول إعادة تشكيل بروتين غشائي بوساطة المغسلة، وهو السيتوكروم bo3 يوبيكوينول أوكسيداز، إلى حويصلات أحادية السطح كبيرة مصنوعة من PDMS-g-PEO وتحويلها إلى حويصيلات عملاقة عبر الاندماج والتشكيل الكهربائي. المقصورات الوظيفية الناتجة القائمة على البوليمر مناسبة للدراسات الكيميائية الحيوية والفيزيائية الحيوية المتقدمة.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
تحضير الحويصلات الهجينة الكبيرة والعملاقة أحادية السطح ذات الغلاف الوظيفي من بروتين الغشاء والنظام الوظيفي بين بوليمر وبوليمر ودهون
في هذه المقالة
ملخص
الملخص
توفر الحويصلات التي تتكون من البوليمرات المشتركة الأمفيفيليك، بمفردها أو ممزوجة مع الفوسفوليبيدات، استقرارا ميكانيكيا وكيميائيا أعلى مقارنة بالحويصلات الدهنية التقليدية. وهذا يجعلها هيكلا جذابا، يمكن تطويره وتوسيعه لتمكين تطبيقات محددة، مثل توصيل الأدوية، والاستشعار الحيوي التشخيصي، وبناء الخلايا الصناعية، والمفاعلات الدقيقة والنانوية المستوحاة حيويا. على وجه الخصوص، فإن الوظيفية من خلال دمج البروتينات الغشائية أمر ضروري للعديد من هذه التطبيقات. هنا، نقدم بروتوكولا لتحضير الحويصلات الأحادية السطح الكبيرة الوظيفية (LUVs) من الطعم المشترك-بوليمر PDMS-g-PEO عبر إعادة تشكيل بالمنظفات. علاوة على ذلك، نوضح كيف يمكن تحويل هذه الحويصلات الكبيرة إلى حويصلات أحادية السطح عملاقة (GUVs) باستخدام نهج الاندماج والتشكيل الكهربائي. يغطي البروتوكول تصنيف البروتينات الغشائية بالفلورة، وتحضير بروتينات LUVs من البوليمر والهجينة، وإعادة تكوين بروتينات الغشاء، وتحليل توزيع الحجم عبر تشتت الضوء الديناميكي (DLS)، وتقييم نشاط البروتين عبر قياسات استهلاك الأكسجين، وتحضير GUVs الوظيفية للبروتين، وتحليل إدخال البروتينات ونشاط ضخ البروتونات في GUVs عبر المجهر الكونفوكلي. تظهر النتائج التمثيلية تكوين بروتيو-LUVs أحادية التشتت ذات مؤشر متعدد التشتت (PDI) أقل من 0.2، وتوليد ناجح لبروتيو-GUVs يتراوح قطرها بين 5–35 ميكرومتر. يتم تأكيد نشاط البروتين من خلال قياسات استهلاك الأكسجين في كل من LUVs البوليميري (18.2 نانومول/دقيقة/مل) وLUVs الهجين (26.9 نانومول/دقيقة/مل). يتم قياس كمية إدخال البروتين في GUVs عبر شدة الفلورة، مما ينتج 20.6 ± 3.7 a.u. لجرعات GUVs البوليمرية و26.2 ± 5.0 a.u. للGUVs الهجينة. نشاط ضخ البروتونات في GUVs، الذي يتم مراقبته عبر صبغة مغلفة حساسة للرقم الهيدروجيني، يتوافق مع وظيفة البروتين، حيث يكون ضخ البروتونات الداخلي هو السائد. تدعم نعومة البوليمر الميكانيكية وسماكة الطبقة الثنائية الشبيهة بالدهون (~5.3 نانومتر) إدخال البروتين بكفاءة والحفاظ على وظيفتها.
المقدمة
يمكن للكولوليمرات المشتركة للكتل الأمفيفيلية أن تتجمع ذاتيا في محلول مائي إلى أغشية، تنحني تلقائيا وتغلق على نفسها لتشكل حجرات كروية مغلقة بالغشاء تعرف باسم البوليمرسومات (الحويصلات البوليمرية). مقارنة بأغشية الدهون، توفر الحجرات القائمة على البوليمرات مرونة كيميائية أكبر واستقرارا كيميائيامعززا 1 وميكانيكي2، مما يجعلها جذابة للغاية لتطبيقات مثل توصيل الأدوية، والمفاعلات النانوية والدقيقة، وبناء خلايا صناعية متينة. كل من مجموعتنا ومجموعات أخرى قامت بعمل الأغشية البوليمرية عن طريق إدخال بروتينات غشائية لإنشاء عضيات وخلايا صناعية 1,3,4,5,6,7,8,9,10,11,12,13,14,15 . البوليمرات التي تحتوي على نواة بولي (ثنائي ميثيل سيلوكسان) الكارهة للماء (PDMS) مناسبة بشكل خاص لدمج بروتين الغشاء بسبب مرونتها العالية للسلاسل وإمكانية ضبط سمك الغشاء الكاره للماء ليتناسب بشكل أفضل مع مجال البروتين العابر للغشاء5. بينما ركز مختبرنا بشكل أساسي على البوليمر المشترك للطعم بولي (ثنائي ميثيل سيلوكسان)-بولي الطعم (أكسيد الإيثيلين) (PDMS-g-PEO)، الذي يشكل أغشية ديناميكية عالية 4,16,17 وهي أكثر ليونة من طبقات الدهون التقليدية وتظهر سمكا يقارب 5.3 نانومتر 1، نجحت مجموعات أخرى في استخدام البوليمرات المشتركة الثلاثية البنية على PDMS مثل PMOXA-b-PDMS-b-PMOXA5,6,7,8,9,10,11 وPEtOz-b-PDMS-b-PEtOz12 لإعادة تكوين البروتين الغشائي. حتى البوليمرات المشتركة ذات الكتلة الثنائية الصلبة نسبيا مثل PBD-b-PEO، خصوصا في الأنظمة الهجينة الممزوجة بالدهون، تم استخدامها لدمج البروتين بنجاح13. تبرز هذه الأمثلة مرونة الأغشية البوليمرية كمنصات إعادة تكوين، والتي يمكن أن توفر أيضا استقرارا كيميائيا معززاوعمرا وظيفيا مطولا للبروتينات الغشائية المدمجة. على الرغم من أن أغشية البوليمر والدهون الهجينة قد لا تتطابق دائما مع الاستقرار الكيميائي لأنظمة البوليمر النقي1، إلا أنها تقدم حلا وسطا جذابا من خلال الجمع بين المتانة الميكانيكية للبوليمرات والأهمية البيولوجية للدهون. ينتج عن ذلك بيئة غشائية تحاكي الأغشية البيولوجية الأصلية بشكل أوثق مع الحفاظ على المزايا الرئيسية للمواد الصناعية. يمكن أن تقدم هذه البنى الهجينة مزايا إضافية، بما في ذلك تقليل نفاذية البروتونات الناتجة عن إعادة ترتيب النانويين1 وتكوين المجال داخل الغشاء15.
توجد عدة تقنيات لإعادة تكوين بروتينات الغشاء إلى حويصلات نانوية الحجم (LUVs)، بما في ذلك إعادة التكوين بالمذيب العضوي (مثل التبخر العكسي، إعادة ترطيب أغشية بروتينات الدهون)، الأساليب الميكانيكية (مثل الصوت، الفرنش برس، التجميد والذوبان)، وإعادة التكوين بالمسحوق (عن طريق إزالة المغسلة أو التخفيف أو الدمج المباشر)18، واستراتيجيات أحدث مثل النقل المباشر من أقراص النانو البوليمرية المشتركة لحمض الستايرين-ماليك19. بينما تم دمج البورينات بنجاح في LUVs البوليمرية من خلال الإدخال المباشر، على سبيل المثال، عن طريق إضافة البروتين إلى طبقة البوليمر أثناء إعادة الترطيب8. يؤدي هذا النهج عادة إلى انخفاض كفاءة الإدخال للبروتينات الغشائية الأكبر أو الأكثر تعقيدا وغالبا ما يؤدي إلى توجه عشوائي للبروتينات. وبالتالي، تظل إعادة التكوين بالوساطة بالمغسلة، والتي تتضمن إضافة محكومة للمنظف ثم إزالته، الطريقة الأكثر استخداما. كما أنها الاستراتيجية المفضلة لدمج بروتينات أغشائية أكبر في LUVs القائمة على البوليمر، خاصة للبروتينات غير المتماثلة حيث يكون التوجيه المتحكم فيه أمرا بالغ الأهمية للوظيفة. في هذا النهج، تشبع أغشية الحويصلات أولا بالمنظف المفضل (يرمز إلى تركيز المغسلة المشبعة ب Rsat)، أو تذوب جزئيا (تعايش الحويصلات والميسيل)، أو تذوب بالكامل، أي تتحلل إلى ميسيلز (ويرمز إلى تركيز المنظف ب Rسول). يتبع هذا العلاج الغشائي الأولي إضافة البروتين، والحضانة، وإزالة المنظفات18. يمكن تحقيق الأخير عن طريق الغسيل الكلوي، أو الكروماتوغرافيا بإقصاء الحجم، أو الامتصاص على خرز البوليسترين الكارهة للماء (مثل بيو-بيدز). يتم تحسين اختيار المغسفل، وتركيزه، وطريقة الإزالة لكل نوع من الغشاء والبروتين لتعظيم كفاءة الدمج والتحكم في اتجاه البروتين20.
بينما تعتبر LUVs مناسبة جدا لقياس النشاط الكلي، تتطلب دراسات الحويصلة الواحدة والتحليلات القائمة على المجهر البصري إعادة تشكيل بروتينات الغشاء إلى حويصلات أحادية السطح عملاقة (GUVs). تستخدم خمسة طرق رئيسية لدمج البروتين في الميكروفونات السطحية الطبيعية: التكوين المشترك في وجود البروتين والمذيب العضوي21، التكوين المشترك في وجود منظف22، الإدخال في GUVs المكونة مسبقا عبر تخفيف المغسلة23، الإدخال عبر دمج الغشاء مع بروتيو-LUVs16,24، والاندماج-التشكيل الكهربائي25. على الرغم من أن هذه الأساليب قد تم تطبيقها بنجاح على GUVs الدهنية، إلا أن نقلها إلى GUVs الهجينة من البوليمر أو البوليمر/الدهون غالبا ما يكون تحديا. على وجه الخصوص، غالبا ما تؤدي طرق التكوين المشترك وتخفيف المنظفات إلى انخفاض كفاءة الإدخال في أغشية البوليمر أو غير متوافقة مع بعض تركيبات البوليمرات15. استراتيجيات الاندماج 4,16,24,26,27 التي تعتمد على عوامل فيوزوجينية إضافية قد تكون أيضا إشكالية، حيث يمكن أن تؤثر الدهون الكاتيونية/البوليمرات الاصطناعية أو الببتيدات المسببة للفوزوجين على استقرار بروتين الغشاء، أو تغير خصائص الغشاء، أو تقلل من كفاءة دمج البروتين المستهدف. يتغلب الاندماج والتشكيل الكهربائي على العديد من هذه القيود وقد أثبت أنه طريقة قوية وفعالة لدمج بروتينات الغشاء في بروتينات الغلاف السطحي الهجينة من البوليمر والبوليمر/الدهون 1,5,15. يتيح هذا النهج دمج البروتينات بشكل محكم مع الحفاظ على سلامة الغشاء ووظائف البروتين، مما يجعله مناسبا بشكل خاص لتوليد GUVs بوليمرية وظيفية للبروتين.
إعادة تشكيل مضخات البروتون إلى حويصلات قائمة على البوليمر أمر ضروري لبناء خلايا صناعية متينة، لأنه يمكن من توليد تدرجات بروتونات عبر الغشاء—وهي العملة الأساسية للطاقة في الأنظمة الحية. من خلال إعادة خلق تحويل الطاقة الكيميائية الأسموزية في بيئة غشائية مصغرة مضبوطة28، يمكن لهذه الحويصلات أن تدفع تخليق ATP، والنقل النشط، والتفاعلات الأيضية، مما يؤسس الأساس الطاقي اللازم لوظيفة ذاتية الحياة وذاتية التأثير. أحد المضخات البروتونية الممثلة المستخدمة في مثل هذه الأنظمة هو السيتوكروم بو3 أوكسيداز من الإشريكية القولونية، وهو إنزيم تنفسي نهائي يربط تقليل الأكسجين بنقل البروتونات عبر الغشاء. نظرا لأن انتقال الإلكترونات وضخ البروتونات مرتبطان ارتباطا وثيقا، يمكن مراقبة نشاطهما في الحويصلات الصناعية كميا إما من خلال استهلاك الأكسجين 1,20 أو بتتبع تكوين تدرج البروتونات1.
في هذا البروتوكول، نقدم سير عمل مفصل لتحضير LUVs المعتمدة على PDMS-g-PEO، بما في ذلك الأغشية الهجينة من البوليمر النقي وبوليمر/الدهون، ووظائفها مع بروتينات الغشاء، وتوسعها إلى GUVs، وقياسات نشاط مضخة البروتون المعاد تشكيلها من خلال اختبارات استهلاك الأكسجين السائل وقياسات ضخ البروتون الأحادي الحويصلة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
ملاحظة: يجب التخلص من جميع النفايات الكيميائية الخطرة الناتجة خلال هذا البروتوكول وفقا للوائح المؤسسية والمحلية.
1. التحضير لبيو-بيدز SM-2
ملاحظة: يتم غسل بيو-بيدز SM-2 مسبقا بالميثانول لإزالة المواد الحافظة والملوثات العضوية قبل امتصاص المنظفات.
- ضع ورق الفلتر في قمع زجاجي موضوع فوق كأس زجاجي نظيف أو قارورة.
- أضف على الأقل 600 ملغ من Bio-Beads SM-2 إلى القمع (وهو ما يكفي لثلاث مرات إعادة التكوين لكل من LUVs الهجين والبوليمر).
ملاحظة: يتطلب كل إعادة تركيب ما لا يقل عن 90 ملغ من بيو-بيدز SM-2 حسب الخطوة 4.4.1. يمكن إعداد كمية أكبر إذا تم التخطيط لمزيد من إعادة التأسيس. - اغسل الخرزات ثلاث مرات بالميثانول النقي، مع استخدام حجم كاف لغمر الخرزات بالكامل في كل مرة.
تحذير: قم بجميع خطوات التعامل مع الميثانول في غطاء بخار كيميائي. - اغسل الخرز فورا ثلاث مرات بماء ميلي-كيو لإزالة بقايا الميثانول.
ملاحظة: لا تدع الخرزات تجف أثناء عملية الغسيل. عند إزالة محاليل الغسيل، تأكد من بقاء الخرزات رطبة ولا تسمح لها بأن تجف تماما. - انقل الخرزات المغسولة إلى حاوية تخزين مناسبة (مثل أنبوب طرد مركزي معقم بسعة 50 مل من البولي بروبيلين أو زجاجة زجاجية مع غطاء مغلق بإحكام)، أضف ماء ميلي-كيو حتى تغمر الخرزات تماما، وخزنها عند درجة حرارة 4 درجات مئوية لمدة تصل إلى 3 أشهر.
2. وسم الفلورة لبروتينات الغشاء
- تخفيف البروتين
- قم بإذابة أوكسيداز السيتوكروم بو 3 إلى 2.2 ملغ/مل في محلول HEPES بحجم 20 ملممول يحتوي على 0.05٪ من n-dodecyl β-D-مالتوسيد (DDM) (مع الخصم/الخلف)، pH 8.3. يضمن هذا الرقم الهيدروجيني نسبة كافية من الأمينات الأولية غير البروتونية (التفاعلية) لتحقيق وسم فعال.
ملاحظة: للحصول على أفضل وضع علامة باستخدام أصباغ ATTO N-hydroxysuccinimidyl (NHS)، حافظ على درجة حموضة العزل بين 8.3 و8.5. بالنسبة للأصباغ الأخرى، اتبع تعليمات الشركة المصنعة بشأن اقتران البروتين، بما في ذلك شروط الموصى بها على التصنيف.
- قم بإذابة أوكسيداز السيتوكروم بو 3 إلى 2.2 ملغ/مل في محلول HEPES بحجم 20 ملممول يحتوي على 0.05٪ من n-dodecyl β-D-مالتوسيد (DDM) (مع الخصم/الخلف)، pH 8.3. يضمن هذا الرقم الهيدروجيني نسبة كافية من الأمينات الأولية غير البروتونية (التفاعلية) لتحقيق وسم فعال.
- إضافة الصبغة
- أضف فائض مولي بمقدار ثمانية أضعاف من استستر ATTO 643 N-hydroxysuccinimidyl (NHS) التفاعلي مع الأمين، مذاب عند 2 ملغ/مل في DMSO اللامائي، إلى محلول البروتين.
ملاحظة: بالنسبة للأصباغ الأخرى، اتبع تعليمات الشركة المصنعة بشأن اقتران البروتين، بما في ذلك الفائض الموصى به من الصبغة إلى البروتين. - اخلط بلطف عن طريق النقر على أنبوب الطرد المركزي الدقيق ثلاث مرات لضمان توزيع متجانس للصبغة.
- أضف فائض مولي بمقدار ثمانية أضعاف من استستر ATTO 643 N-hydroxysuccinimidyl (NHS) التفاعلي مع الأمين، مذاب عند 2 ملغ/مل في DMSO اللامائي، إلى محلول البروتين.
- الحضانة
- حضن خليط التفاعل في درجة حرارة الغرفة (20–25 درجة مئوية) لمدة 1.5 ساعة تحت تحريك خفيف (250 دورة في الدقيقة) في خلاط حراري، وفي الظلام لمنع التبييض الضوئي.
- إزالة الصبغة غير المرتبطة
- توازن عمود Superdex 200 10/300 GL (CV: 23.562 mL) مع حجم عمودي على الأقل (حوالي 48 مل) من مخزن تفريغ البروتين الغشائي (20 mM HEPES، pH 7.5، 200 mM KCl، 0.05٪ DDM (w/v)) بمعدل تدفق 0.3 مل/دقيقة باستخدام نظام تنقية ÄKTA.
ملاحظة: لإزالة الصبغة الفلورية الزائدة، تكون أعمدة ترشيح الهلام الأقصر (طول السرير 10–20 سم) كافية عموما، خاصة للأصباغ الأقل محبة للماء. توصي شركة تصنيع الصبغة بإزالة الملح باستخدام مصفوفة Sephadex G-25. تم استخدام عمود Superdex 200 10/300 GL في هذه الدراسة بسبب توفر الجهاز. - تحميل ما يصل إلى 500 ميكرولتر من البروتين الموسوم باستخدام حلقة شعرية بحجم 1 مل وسحب بنفس المخزن عند 0.3 مل/دقيقة.
- راقب الاشتر بقياس الامتصاص عند 280 نانومتر للبروتين و643 نانومتر لصبغة ATTO 643.
- اجمع كسور بحجم 0.5 مل على حجم عمود 1.5. حدد الكسور التي تحتوي على كل من البروتين والصبغة. استخدم مباشرة إذا كان مركزا بما فيه الكفاية، أو ركز باستخدام وحدات مرشح أميكون الطرد المركزي. للتركيز باستخدام مرشحات الأميكون، استخدم مرشحا طرد مركزي بوزن جزيئي 30 كيلو دالتون، وجهاز طرد مركزي عند 14,000 × جرام لمدة 30 دقيقة عند 4 درجات مئوية.
- توازن عمود Superdex 200 10/300 GL (CV: 23.562 mL) مع حجم عمودي على الأقل (حوالي 48 مل) من مخزن تفريغ البروتين الغشائي (20 mM HEPES، pH 7.5، 200 mM KCl، 0.05٪ DDM (w/v)) بمعدل تدفق 0.3 مل/دقيقة باستخدام نظام تنقية ÄKTA.
- تحديد تركيز البروتين ودرجة الوسم (DOL)
- قس أطياف الامتصاص للمرافق المنقى.
- احسب تركيز البروتين ومتوسط عدد جزيئات الصبغة لكل إنزيم باستخدام:
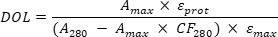
حيث يمثل A الحد الأقصى امتصاص الاقترافا عند أقصى امتصاص للصبغة (λabs؛ ATTO 643، λ = 643 نانومتر)، A280 هو الامتصاص عند 280 نانومتر (أقصى امتصاص للبروتينات)، εبروت هو معامل انقراض المولر لسيتوكروم بو3 أكسيداز (184,720 M⁻1سم⁻1)، εالصبغة هو معامل انقراض الصبغة المولارية (150,000 M⁻1سم⁻1)، وCF280 هو عامل تصحيح لامتصاص ATTO 643 عند 280 نانومتر (0.04).
3. تحضير الحويصلات أحادية السطح الكبيرة (LUVs)
- تحضير طبقة رقيقة من البوليمر أو البوليمر/الدهون
- استخدم ماصات ذات إزاحة إيجابية ذات أطراف مقاومة للمذيبات أو حقن زجاجية محكمة العزل لنقل محاليل البوليمر والدهون وصبغات الفلورية المذابة في الكلوروفورم:الميثانول (2:1، فولت/فولت) إلى قارورة زجاجية نظيفة وفقا للتراكيب المدرجة في الجدول 1.
تحذير: قم بالتعامل مع المذيبات بالكامل تحت غطاء بخار وارتداء قفازات واقية ونظارات أمان. - اخلط المحلول جيدا عن طريق الدوامة اللطيفة مع تثبيت القارورة بشكل عمودي لضمان التجانس.
تحذير: اضبط سرعة الدوامة بعناية لمنع السائل من الرش أو الرش من القارورة على يديك. - تبخر المذيبات العضوية تحت تيار لطيف من النيتروجين داخل غطاء الزجاج لمدة ساعة تقريبا، حتى يتكون طبقة رقيقة منتظمة على جدار القارورة (الشكل 1).
ملاحظة: ضبط تدفق النيتروجين بحيث يتحرك السائل برفق دون أن يرش الماء؛ التدفق العالي جدا يمكن أن يسبب تكون الفيلم غير المتساو. بعد 5–10 دقائق، يمكن زيادة التدفق قليلا لضمان الجفاف الكامل وانتشار خليط الحويصلات على قاع القارورة.
- استخدم ماصات ذات إزاحة إيجابية ذات أطراف مقاومة للمذيبات أو حقن زجاجية محكمة العزل لنقل محاليل البوليمر والدهون وصبغات الفلورية المذابة في الكلوروفورم:الميثانول (2:1، فولت/فولت) إلى قارورة زجاجية نظيفة وفقا للتراكيب المدرجة في الجدول 1.
- إعادة ترطيب الفيلم
- أعد ترطيب الفيلم المجفف ب 1 مل من محلول إعادة الترطيب (1 ملليموتر تريس-HCl، درجة الحموضة 7.5، 200 ملليمولار السكروز) للحصول على تركيز نهائي للأمفيفيل يبلغ 5 ملغ/مل (يعادل 1.67 ملليمولار للبوليمرسومات و2.14 ملليمول للحويصلات الهجينة). إذا تم استخدام البوليمرسومات لإعادة التكوين، أضف محلول إعادة الترطيب ب 0.1٪ كولات الصوديوم.
تحذير: كولات الصوديوم مهيج خفيف. تجنب التلامس المطول للجلد واستنشاق البودرة. التعامل مع الأمر وفقا لورقة بيانات السلامة الخاصة بالشركة المصنعة (SDS). - تدور دوامة بقوة حتى ينفصل الفيلم تماما ويعلق، مكونة حويصات متعددة الصفائح (MLVs).
- أعد ترطيب الفيلم المجفف ب 1 مل من محلول إعادة الترطيب (1 ملليموتر تريس-HCl، درجة الحموضة 7.5، 200 ملليمولار السكروز) للحصول على تركيز نهائي للأمفيفيل يبلغ 5 ملغ/مل (يعادل 1.67 ملليمولار للبوليمرسومات و2.14 ملليمول للحويصلات الهجينة). إذا تم استخدام البوليمرسومات لإعادة التكوين، أضف محلول إعادة الترطيب ب 0.1٪ كولات الصوديوم.
- دورات التجمد والذوبان (الحويصلات الهجينة فقط)
- يتم تعليق العينات الهجينة في MLV إلى خمس دورات تجميد وإذابة كما يلي: تجميد العينات في النيتروجين السائل لمدة دقيقة واحدة، ثم إذابتها في حمام ماء بدرجة حرارة 35 درجة مئوية حتى تذوب تماما، ودوامة عند 2500–3000 دورة في الدقيقة لمدة 30 ثانية باستخدام هزاز الأنبوب. كرر هذا الإجراء لمدة خمس دورات إجمالا.
ملاحظة: تجاوز هذه الخطوة للبوليمرسومات النقية.
تحذير: النيتروجين السائل (−196 درجة مئوية) يمكن أن يسبب حروقا شديدة بسبب التبريد. أمسك في منطقة جيدة التهوية وارتدى معدات الحماية الشخصية المناسبة (قفازات تبريدية، نظارات أمان، ومعطف مختبر). تجنب ملامسة الجلد والعينين.
- يتم تعليق العينات الهجينة في MLV إلى خمس دورات تجميد وإذابة كما يلي: تجميد العينات في النيتروجين السائل لمدة دقيقة واحدة، ثم إذابتها في حمام ماء بدرجة حرارة 35 درجة مئوية حتى تذوب تماما، ودوامة عند 2500–3000 دورة في الدقيقة لمدة 30 ثانية باستخدام هزاز الأنبوب. كرر هذا الإجراء لمدة خمس دورات إجمالا.
- البثق
- انقل تعليق الحويصلات إلى جهاز صغير مزود بغشاء بولي كربونات بحجم مسام 100 نانومتر.
- قم ببثق التعليق 21 مرة للحصول على LUVs متجانسة في الحجم.
ملاحظة: تأكد من أن خطوة البثق النهائية تترك تعليق LUV في الحقنة المقابلة للحقنة التي تحمل التحميل الأولي. يقلل هذا من تلوث العينة النهائية بحويصلات أكبر أو مواد متبقية قد لا تكون مرت بالكامل عبر الغشاء.
- التخزين
- تخزين تعليق LUV عند 4 درجات مئوية واستخدامه خلال أسبوع للحفاظ على توزيع حجم الحويصلات ومنع التجمع أو نمو الميكروبات في المخزن المحتوي على السكروز.
- قبل الاستخدام، قم بتجانس تعليق LUV بلطف عن طريق الدوامة.
4. إعادة تكوين بروتين الغشاء إلى LUVs
- معالجة ما قبل الحويصلات باستخدام المغسلة
- انقل 200 ميكرولتر من LUVs إلى أنبوب طرد مركزي دقيق بسعة 2 مل (الشكل 1). عند استخدام LUVs الهجينة، أضف 1 ميكرولتر من كولات الصوديوم 20٪ (مع الفولت) للحصول على تركيز نهائي للمنظف يبلغ 0.1٪ (w/v). عند استخدام LUVs بوليمرية، لا حاجة لمنظف إضافي لأن كولات الصوديوم موجود بالفعل.
ملاحظة: جهز مخزن المنظف في نفس المخزن المستخدم في التجارب لضمان التوافق مع الحويصلات. - اخلط بلطف عن طريق النقر الخفيفة على أنبوب الطرد المركزي الدقيق ثلاث مرات. تجنب التحريك القوي أو الدوامات، التي قد تنتج الرغوة وتسبب فقاعات هواء.
- انقل 200 ميكرولتر من LUVs إلى أنبوب طرد مركزي دقيق بسعة 2 مل (الشكل 1). عند استخدام LUVs الهجينة، أضف 1 ميكرولتر من كولات الصوديوم 20٪ (مع الفولت) للحصول على تركيز نهائي للمنظف يبلغ 0.1٪ (w/v). عند استخدام LUVs بوليمرية، لا حاجة لمنظف إضافي لأن كولات الصوديوم موجود بالفعل.
- إدخال البروتين إلى الحويصلات المعالجة بالمنظفات
- أضف سيتوكروم بو3 أوكسيداز (لقياس النشاط) أو سيتوكروم بو 3 أوكسيداز – ATTO 643 (للتصوير الفلوري) إلى الحويصلات غير المستقرة بالمصارف لتحقيق تركيزات البروتين النهائية التالية: للبوليمرسومات، 0.556 ميكرومولار لتجارب LUV و1.112 ميكرومولار لتجارب GUV؛ للحويصيلات الهجينة، 0.714 ميكرومولار لتجارب LUV و1.428 ميكرومولار لتجارب GUV.
ملاحظة: تتوافق هذه التركيزات مع نسبة مولية للبروتين إلى البوليمر تبلغ 1:3,000 للبروتينات المنخفضة و1:1,500 للبروتينات السطحية السطحية. - أضف البروتين ببطء أثناء الخلط بلطف، بهدف توزيعه بشكل متساو في المحلول وتجنب التركيز المفرط محليا.
ملاحظة: قد يختلف حجم البروتين المضاف بين الأجزاء بسبب اختلافات في تركيز مخزون البروتين.
- أضف سيتوكروم بو3 أوكسيداز (لقياس النشاط) أو سيتوكروم بو 3 أوكسيداز – ATTO 643 (للتصوير الفلوري) إلى الحويصلات غير المستقرة بالمصارف لتحقيق تركيزات البروتين النهائية التالية: للبوليمرسومات، 0.556 ميكرومولار لتجارب LUV و1.112 ميكرومولار لتجارب GUV؛ للحويصيلات الهجينة، 0.714 ميكرومولار لتجارب LUV و1.428 ميكرومولار لتجارب GUV.
- تجميع مركبات البروتين-المنظيف-البوليمر
- حضن الخليط عند 4 درجات مئوية لمدة 30 دقيقة مع تحريك خفيف (400 دورة في الدقيقة) في خلاط حراري للسماح بتكوين تجمعات مختلطة من البروتين والمغسل والبوليمر قبل إزالة المنظفات.
- إزالة المنظفات
- إزالة المغسلة بإضافة بيو-بيدز SM-2 (Bio-Rad) بشكل متتالي. أزل 30 ملغ من بيو-بيدز من محلول التخزين، مع التأكد من بقائها رطبة (رطبة ولكن بدون سائل زائد). أضف الخرزات إلى العينة وحضن لمدة 30 دقيقة عند 4 درجات مئوية مع تحريك خفيف عند 600 دورة في الدقيقة في خلط حراري. كرر هذه الخطوة مرتين إضافيتين، ليصبح المجموع 90 ملغ من بيو-بيدز ووقت الحضانة الكلي 1.5 ساعة.
ملاحظة: استخدم فقط خرز بيولوجي مرطب بالكامل. لا تنقل الخرزات الجافة، أو الخرزات الملتصقة بجدران أنبوب التخزين في Bio-Beads، أو الخرزات الطافية على السطح. إذا التصقت الخرزات بجدار أنبوب تفاعل إعادة التكوين فوق مستوى السائل بعد الإضافة، قم بعمل طرد مركزي مؤقت للأنبوب (مثلا 3–5 ثوان في جهاز الطرد المركزي المصغر على الطاولة) لجمع الخرزات من الأسفل قبل الحضانة. - قم بعمل حبيبات الحبيبات الحيوية بالطرد المركزي عند 2000 × جرام لمدة دقيقتين باستخدام جهاز طرد مركزي صغير على سطح الطاولة. اجمع الفائق بعناية دون إزعاج حبيبات الخرز.
ملاحظة: كبديل للطرد المركزي، دع الخرزات تستقر بالجاذبية لمدة تقارب 5 دقائق، ثم أزل السوبرناتانت بعناية.
- إزالة المغسلة بإضافة بيو-بيدز SM-2 (Bio-Rad) بشكل متتالي. أزل 30 ملغ من بيو-بيدز من محلول التخزين، مع التأكد من بقائها رطبة (رطبة ولكن بدون سائل زائد). أضف الخرزات إلى العينة وحضن لمدة 30 دقيقة عند 4 درجات مئوية مع تحريك خفيف عند 600 دورة في الدقيقة في خلط حراري. كرر هذه الخطوة مرتين إضافيتين، ليصبح المجموع 90 ملغ من بيو-بيدز ووقت الحضانة الكلي 1.5 ساعة.
- التخزين
- تخزين بbo 3-LUVs المعاد تكوينها عند 4 درجات مئوية واستخدمها في نفس اليوم لقياس نشاط البروتين.
5. حجم وتشتت LUVs بواسطة تشتت الضوء الديناميكي (DLS)
- تحميل LUVs لقياسات DLS
- انقل 45 ميكرولتر من تعليق LUV أو Proteo-LUV غير المخفف إلى كوفيت كوارتز نظيف. تأكد من أن الكوفيت خال من الغبار أو بصمات الأصابع أو أي بقايا أخرى لتقليل تشتت الضوء.
ملاحظة: تجنب إدخال فقاعات الهواء، لأنها قد تتداخل مع قياسات DLS. لمنع ظهور فقاعات، قم بعمل الماصة ببطء على طول جدار الكوفيت ولا تطرد آخر قطرة بقوة. إذا تكونت فقاعات صغيرة، دعها ترتفع وتتلاشى قبل القياس.
- انقل 45 ميكرولتر من تعليق LUV أو Proteo-LUV غير المخفف إلى كوفيت كوارتز نظيف. تأكد من أن الكوفيت خال من الغبار أو بصمات الأصابع أو أي بقايا أخرى لتقليل تشتت الضوء.
- تحديد حجم وتشتت LUV بواسطة DLS
- قس القطر الهيدروديناميكي ومؤشر التشتت المتعدد (PDI) باستخدام جهاز DLS مزود بليزر هيليوم-نيون بقطر 633 نانومتر وكشف التشتت العكسي بزاوية ثابتة 173°.
- قم بإجراء ثلاث قياسات مستقلة على الأقل لكل عينة لضمان قابلية التكرار.
- تحليل البيانات باستخدام نموذج التوزيع الطبيعي، الأغراض العامة (التوزيع الطبيعي) للحصول على متوسط الحجم ومؤشر التناسل.
6. تحليل استهلاك الأكسجين في المركبات المنخفضة المنخفضة
- إعداد درجة الحرارة
- اضبط غرفة القياس في نظام قطب الأكسجين من نوع كلارك على 22 درجة مئوية والسماح للنظام بالاستقرار.
- إضافة المخزن المؤقت
- أضف 1 مللي مولار من Tris-HCl (pH 7.5)، و200 ملليمول من السكروز إلى غرفة القياس ليصل إجمالي الحجم إلى 1,000 ميكرولتر. اضبط حجم المخزن وفقا لنوع العينة: 942.9 ميكرولتر لبوليمرbo 3-LUVs و953.7 ميكرولتر للهجين bo-3-LUVs.
ملاحظة: الحجم المتبقي سيشغل بواسطة LUVs وخليط DTT/Q₁ للوصول إلى حجم القياس النهائي.
- أضف 1 مللي مولار من Tris-HCl (pH 7.5)، و200 ملليمول من السكروز إلى غرفة القياس ليصل إجمالي الحجم إلى 1,000 ميكرولتر. اضبط حجم المخزن وفقا لنوع العينة: 942.9 ميكرولتر لبوليمرbo 3-LUVs و953.7 ميكرولتر للهجين bo-3-LUVs.
- إضافة LUVs
- أضف مركباتبو 3-LUV إلى غرفة القياس وابدأ التحريك اللطيف باستخدام التحريك المغناطيسي عند 100 دورة في الدقيقة و22 درجة مئوية. اضبط حجم bo 3-LUVs لتحقيق تركيز نظري من أوكسيداز bo3 يبلغ حوالي 27 نانومتر: 48.6 ميكرولتر لبوليمرbo 3-LUVs و37.8 ميكرولتر للهجين bo 3-LUVs.
ملاحظة: بالنسبة للتحكم السلبي، استبدل BO 3-LUVs بحجم مكافئ من LUVs الخالية من البروتين بنفس تركيبة وتركيز الدهون والبوليمر. جميع الخطوات اللاحقة تبقى متطابقة.
- أضف مركباتبو 3-LUV إلى غرفة القياس وابدأ التحريك اللطيف باستخدام التحريك المغناطيسي عند 100 دورة في الدقيقة و22 درجة مئوية. اضبط حجم bo 3-LUVs لتحقيق تركيز نظري من أوكسيداز bo3 يبلغ حوالي 27 نانومتر: 48.6 ميكرولتر لبوليمرbo 3-LUVs و37.8 ميكرولتر للهجين bo 3-LUVs.
- القياس الأساسي
- دع تركيز الأكسجين يستقر وقم بالقياس لمدة 3 دقائق تحت التحريك المستمر عند 22 درجة مئوية للحصول على خط أساس مستقر.
- تحضير خليط الاختزال / الكينون
- جهز خليط DTT/Q₁ مباشرة قبل الاستخدام عن طريق خلط 9.6 ميكرولتر من 1 M DTT في ماء Milli-Q مع 0.6 ميكرولتر من 80 mM يوبيكينون-1 (Q₁) في DMSO، ثم قم بعمل دوامة كاملة لضمان التجانس.
- تنشيط الإنزيمات
- تفعيل أوكسيدازbo3 بإضافة 8.5 ميكرولتر من خليط DTT/Q₁ الطازج إلى غرفة القياس، مما ينتج تركيزات نهائية 8 mM DTT و40 ميكرومولار Q₁.
- النسخ المقلدة
- قس كل عينة ثلاث مرات لضمان قابلية التكرار.
- تحليل البيانات
- ارسم تركيز الأكسجين مقابل الوقت. تحديد ميل الجزء الخطي من المنحنى، والذي يتوافق مع معدل استهلاك الأكسجين.
- التقارير
- أبلغ معدل استهلاك الأكسجين كمتوسط لثلاثة قياسات، مع الانحراف المعياري.
7. تحضير GUVs الوظيفية بالبروتين
- تنظيف البلازما لشرائح الزجاج المطلية ب ITO
- ضع شرائح زجاجية مغطاة بأكسيد القصدير (ITO) داخل منظف البلازما بحيث يكون الجانب الموصل (المطلي ب ITO) مواجها للأعلى. تقوم البلازما بتنظيفها لمدة دقيقة واحدة عند إعداد طاقة عالية ("HI") (230 فولت، أقصى قدرة تردد لاسلكي 18 واط) وضغط يقارب 0.5 مللي بار.
ملاحظة: يمكن تأكيد نجاح الاشتعال بالبلازما بصريا من خلال ظهور توهج وردي/بنفسجي داخل الحجرة.
- ضع شرائح زجاجية مغطاة بأكسيد القصدير (ITO) داخل منظف البلازما بحيث يكون الجانب الموصل (المطلي ب ITO) مواجها للأعلى. تقوم البلازما بتنظيفها لمدة دقيقة واحدة عند إعداد طاقة عالية ("HI") (230 فولت، أقصى قدرة تردد لاسلكي 18 واط) وضغط يقارب 0.5 مللي بار.
- الجفاف الجزئي للبروتيو-LUVs
- اخلط 20 ميكرولتر من LUVs الخالية من البروتين مع 20 ميكرولتر من بروتيو-LUVs التي تحتوي على bo3 أوكسيداز-ATTO 643 المعاد تشكيله. الدوامة بلطف لضمان خلط متجانس.
- يتم وضع سبع قطرات بحجم 2 ميكرولتر من تعليق LUV/بروتيو-LUV الناتج بسعة 5 ملغ/ملليتر على السطح الموصل (المطلي ب ITO) لكل شريحة تستخدم للتشكيل الكهربائي (الشكل 2A). وزع القطرات بشكل متساو على سطح 160.6 مم2 ، مع الحفاظ على فصلها لتعزيز تكوين الفيلم بشكل منتظم.
ملاحظة: بالنسبة لأنظمة البوليمر الأخرى، قد يتطلب تركيز LUV وحجم القطرات تحسينا (النطاق النموذجي: 5–100 ملغ/ملتر LUVs؛ 0.2–2 ميكرولتر قطرات). - دع القطرات تجف جزئيا عند درجة حرارة الغرفة (∼22 درجة مئوية) ورطوبة ∼20٪ لمدة تقارب 40 دقيقة، أو حتى تتكون حلقة بيضاء عند محيط القطرة (الشكل 2B).
ملاحظة: الجفاف يعتمد على الرطوبة المحيطة. إذا كانت الرطوبة النسبية فوق 40٪، قم بتمديد وقت الجفاف حسب الحاجة (حتى 20 دقيقة). حدد نقطة النهاية بناء على ظهور حلقة بيضاء عند محيط القطرة بدلا من وقت محدد. تحت ظروف بيئية متسقة (درجة الحرارة والرطوبة)، يمكن تكرار وقت الجفاف المطلوب. تجنب الجفاف الزائد، الذي يظهر على شكل قطرات بيضاء مسطحة تماما وموحدة، لأن ذلك قد يسبب ترسيب البروتين.
- تجميع غرفة التشكيل الكهربائي
- قم بتجميع غرفة التشكيل الكهربائي عن طريق وضع منزلقين مطليين بتقنية ITO (الجوانب المطلية تواجه الداخل) مفصولين بفاصل سيليكون بسماكة 1.81 مم مع قطع من أحد الجانبين، مما يسمح بإضافة أو إزالة المخزن أثناء التعبئة والتجميع.
- املأ الحجرة بمحلول إعادة الترطيب (1 ملليمولايتر تريس-HCl، درجة حموضة 7.5؛ 200 ملم سكروز).
للتجارب الحساسة للرقم الهيدروجيني، أضف 10 ميكرومولار بيرانين (8-هيدروكسي بيرين-1,3,6-حمض ثلاثي السلفونيك ثلاثي الصوديوم، HPTS) إلى المخزن المؤقت.
- التشكيل الكهربائي
- تطبيق مجال كهربائي متردد جيبي باستخدام البرنامج التالي: 50 هرتز عند 50، 100، 200، 300، 500، 700، و900 مللي فولت لمدة 6 دقائق لكل منها؛ 50 هرتز عند 1.1 فولت لمدة ساعتين.
ملاحظة: لتعزيز تكوين بروتيو-GUVs أكبر، يمكن تمديد هذه الخطوة إلى 12 ساعة، و4 هرتز عند 2 فولت لمدة 30 دقيقة لخطوة الانفصال. عندما يحتوي المخزن على 10 ميكرومولايت بيرانين، زد التردد إلى 500 هرتز خلال أول خطوتين لزيادة الجهد.
- تطبيق مجال كهربائي متردد جيبي باستخدام البرنامج التالي: 50 هرتز عند 50، 100، 200، 300، 500، 700، و900 مللي فولت لمدة 6 دقائق لكل منها؛ 50 هرتز عند 1.1 فولت لمدة ساعتين.
- مجموعة المركبات القديمة
- افتح الحجرة بعناية باستخدام الملقط واجمع ماصات GUV باستخدام ماصات FineTip Ultra-Micro Pastette (أو ماصات نقل منخفضة القص مكافئة) لتقليل الإجهاد الميكانيكي.
ملاحظة: تجنب استخدام رؤوس الماصات منخفضة الحجم القياسية التي تقل عن 200 ميكرولتر، لأنها قد تتسبب في تمزق الماصات الأكبر حجما. بدلا من ذلك، يمكن قطع الأطراف القياسية في النهاية لتوسيع الفتحة وتقليل القص أثناء الجمع.
- افتح الحجرة بعناية باستخدام الملقط واجمع ماصات GUV باستخدام ماصات FineTip Ultra-Micro Pastette (أو ماصات نقل منخفضة القص مكافئة) لتقليل الإجهاد الميكانيكي.
- التخزين
- تخزين بروتيو-GUVs عند 4 درجات مئوية واستخدمها خلال 48 ساعة للحفاظ على نشاط البروتين.
ملاحظة: يعتمد معدل فقدان النشاط على نوع واستقرار بروتين الغشاء المعاد تشكيله، وكذلك على تركيب الغشاء.
- تخزين بروتيو-GUVs عند 4 درجات مئوية واستخدمها خلال 48 ساعة للحفاظ على نشاط البروتين.
8. المجهر لجرثات GUV الوظيفية البروتينية
- إعداد المجهر
- شغل المجهر الكونفوكلي. إذا كنت تستخدم نظام لايكا، قم بتشغيل برنامج LAS X. بالنسبة لعلامات المجاهر الأخرى، استخدم برنامج الاستحواذ الموصى به من الشركة المصنعة.
- اختر هدف غمر الزيت بحجم 63× (NA 1.40)؛ قم بتعديل التكبير إلى تكبير أعلى أو أقل إذا لزم الأمر، حسب حجم GUV.
- افتح قناتين تصويريتين تقابلان الفلوروفورات: رودامين ريد (غشاء) وATTO 643 (بروتين معاد تكوينه).
ملاحظة: بالنسبة للفلوروفورات ذات الأطياف المتداخلة جزئيا، اختر خطوط ليزر مناسبة ونوافذ كشف ضيقة لتقليل التداخل الطيفي. احصل على كل قناة بشكل متسلسل لمنع تسرب الإشارة وضمان قياس دقيق للفلورة.
- ترسيب المركبات الأرضية السطحية
- ضع عازل سيليكون من نوع الضغط للختم على غطاء زجاجي نظيف بحجم 1.5 (سمك 0.17 مم).
ملاحظة: للمجاهر العمودية (غير المقلوبة)، قد تستخدم شرائح زجاجية أكثر سماكة. - بيبت 60 ميكرولتر من المخزن (1 مللي مولار تريس-HCl، درجة حموضة 7.5؛ 200 ملليمولار جلوكوز) في مركز الفاصل.
- أضف بلطف 20 ميكرولتر من نظام التعليق GUV فوق المخزن المؤقت.
- غط الحجرة فورا بشريحة زجاجية ثانية لتجنب التبخر.
- اترك الشفرات السطحية تترسب لمدة ~5 دقائق قبل التصوير.
- ضع عازل سيليكون من نوع الضغط للختم على غطاء زجاجي نظيف بحجم 1.5 (سمك 0.17 مم).
- الحصول على الصور
- ركز على أسفل الحجرة لالتقاط مقاطع عرضية لوحدات GUV.
- التقاط صور لمختلف GUVs في جميع أنحاء الغرفة عن طريق المسح بشكل منهجي من الزاوية العلوية-اليسرى إلى الزاوية السفلية اليمنى (نمط "الأفعى") للحصول على عدد ممثل (~100 GUVs). صور جميع الحويصلات التي تصادفها أثناء الفحص دون اختيار مسبق، بغض النظر عن الحجم أو شدة الفلورة، لتجنب تحيز الانتقاء وضمان قابلية التكرار.
ملاحظة: تجنب التصوير المتكرر لنفس الأشعة الخضراء لمنع التبييض الضوئي.
- تحليل الصور
- قم بقياس شدة الفلورة للبروتين الموسوم ب ATTO 643 المعاد تشكيله عن طريق رسم خط متعدد على طول غشاء ال GUVs الفردية. عند استخدام برنامج LAS X، اختر Quantify → Line Profile، ثم اختر أداة البوليلاين وتتبع غشاء كل GUV. للحصول على متوسط شدة التألق، افتح الإحصائيات وسجل القيمة المتوسطة. تحليل فقط الشوائب النظيفة وأحادية الطبقات؛ استبعد الحويصلات متعددة الحويصلات والحويصلات المجمعة من التحليل.
ملاحظة: إذا تم التقاط القياسات في أيام مختلفة، يجب أن يتم تطبيع شدة الفلورة إلى طاقة الليزر، وتقاس تحت إعدادات تصوير متطابقة (الطول الموجي والقدرة الاسمية). لأخذ التغيرات اليومية في خرج الليزر في الاعتبار، يتم تطبيق التطبيع التالي: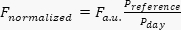 ، حيث Fa.u. هي شدة الفلورة المقاسة بوحدات عشوائية، وPالمرجعي هي قوة الليزر المقاسة في اليوم المرجعي، و هي قوة الليزر المقاسة في يوم الاستحواذ. يفترض هذا التصحيح وجود علاقة خطية بين قوة الليزر وشدة الفلورة تحت ظروف إضاءة غير مشبعة. في هذه الدراسة، تم التقاط جميع الصور في نفس اليوم، وبالتالي لم يكن هناك حاجة لتطبيع الصور.
- أبلغ عن شدة الفلورة بمتوسط 100 GUV مع الانحراف المعياري المقابل.
- قم بقياس شدة الفلورة للبروتين الموسوم ب ATTO 643 المعاد تشكيله عن طريق رسم خط متعدد على طول غشاء ال GUVs الفردية. عند استخدام برنامج LAS X، اختر Quantify → Line Profile، ثم اختر أداة البوليلاين وتتبع غشاء كل GUV. للحصول على متوسط شدة التألق، افتح الإحصائيات وسجل القيمة المتوسطة. تحليل فقط الشوائب النظيفة وأحادية الطبقات؛ استبعد الحويصلات متعددة الحويصلات والحويصلات المجمعة من التحليل.
9. تحليل ضخ البروتونات في بروتيو-GUVs
- إعداد المجهر
- شغل المجهر الكونفوكلي وشغل برنامج الاستحواذ المناسب (مثل LAS X لأنظمة لايكا).
- اختر هدف غمر زيت بحجم 63× (NA 1.40). قم بضبط التكبير إلى تكبير أعلى أو أقل إذا لزم الأمر، حسب حجم GUV.
- قم بتكوين ثلاث قنوات تصوير تتوافق مع الفلوروفورات. بالنسبة لعلامة الرودامين الأحمر (علامة الغشائية)، استخدم إثارة 561 نانومتر ونطاق انبعاث بين 570–620 نانومتر. بالنسبة للبيرانين (صبغة حساسة لدرجة الحموضة مغلفة)، استخدم الإثارة عند 448 نانومتر و405 نانومتر، واجمع الانبعاث عبر 499–551 نانومتر.
ملاحظة: إذا كان ليزر 458 نانومتر متاحا، استخدمه بدلا من 448 نانومتر لتحفيز الشكل الأساسي (منزوع البروتون) من البرانين. - قم بضبط قوة الليزر وكسب الكاشف لتجنب تشبع البكسل وتقليل التبييض الضوئي. حافظ على إعدادات الاستحواذ ثابتة طوال فترة التجربة.
- ترسيب المركبات الأرضية السطحية
- أضف 280 ميكرولتر من المخزن (1 ملليموتر تريس-HCl، رقم الهيدروجينيوم 7.5؛ 200 ملليمولر جلوكوز) إلى بئر واحد من شريحة ذات 8 آبار (إجمالي حجم البئر: ~874 ميكرولتر).
ملاحظة: لا تستخدم أقل من 200 ميكرولتر، لأن الأحجام التي تقل عن 200 ميكرولتر تزيد من التبخر وانحراف الرقم الهيدروجيني. لا تتجاوز 400 ميكرولتر لتجنب الانسكابات وضمان سهولة استخدام الماصبات. إذا كنت تستخدم صيغة غرفة مختلفة، اضبط الصوت وفقا لذلك. بالنسبة للمجاهر المقلوبة، استخدم شرائح الحجرة المتوافقة بسماكة انزلاق الغطاء #1.5H. - أضف بلطف 20 ميكرولتر من نظام تعليق 3-GUV فوق المخزن دون إدخال فقاعات هواء.
ملاحظة: بالنسبة للتحكم السلبي، استبدل نظام التعليقبحجم مكافئ (20 ميكرولتر) من الميكروفون الخالي من البروتين من نفس تركيبة الدهون/البوليمر، محضرة وترسبة تحت ظروف متطابقة. هذا الضابط يأخذ في الاعتبار أي تأثيرات غير محددة ل DTT وQ1 على نسبة فلورة البرانين التي تكون مستقلة عن نشاط أوكسيداز bo3 . - اترك الترسب من الألياف السطحية (GUVs) تتراسب لمدة تقارب 5 دقائق قبل التصوير.
- أضف 280 ميكرولتر من المخزن (1 ملليموتر تريس-HCl، رقم الهيدروجينيوم 7.5؛ 200 ملليمولر جلوكوز) إلى بئر واحد من شريحة ذات 8 آبار (إجمالي حجم البئر: ~874 ميكرولتر).
- الاستحواذ الأساسي
- ركز على المستوى السفلي من الغرفة حيث ترسبت مركبات GUV.
- اضبط التكبير للحصول على 3–6 صور GUV ضمن مجال الرؤية.
- سجل التألق الأساسي في جميع القنوات لمدة 5 دقائق قبل التفعيل.
- تنشيط ضخ البروتونات
- جهز خليطا جديدا من DTT–Q₁ مباشرة قبل الاستخدام بخلط 4.8 ميكرولتر من 1 M DTT مع 0.3 ميكرولتر من 80 مللي مولار Q₁ في DMSO، ثم الخلط جيدا عن طريق الدوامة.
- تفعيل أوكسيداز السيتوكرومبو 3 عن طريق إضافة 2.6 ميكرولتر من خليط DTT–Q₁ بلطف إلى سطح المحلول دون إدخال طرف الماصة في المخزن المؤقت، مما يؤدي إلى تركيزات نهائية تقارب 8 مللي مولار DTT و40 ميكرومولار Q₁ في الحجرة.
- مراقبة التألق داخل الحويصات لمدة 30 دقيقة تحت الاكتساب المستمر.
- تحليل فلورة البرانين داخل الحويصة
- لكل GUV، حدد منطقة اهتمام (ROI) داخل تجويف الحويصلة. في برنامج LAS X، اذهب إلى Quantify → Stack Profile، اختر رسم البيضاوي، وارسم ROI دائري داخل كل GUV.
- لتحديد متوسط شدة الفلورة عند 499–551 نانومتر لكل من الطول الموجي للإثارة (448 نانومتر و405 نانومتر)، افتح الإحصاءات في البرنامج وسجل القيمة المتوسطة.
- احسب نسبة الفلورة ك R = I448/I405.
- رسم النسبة على مدى الزمن للحصول على آثار حركية لتغير الحموضة داخل الحويصل.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
تم التعبير عن سيتوكروم بو3 أكسيداز الإشريكية القولونية من بلازميد pETcyo في سلالة الإشريكية القولونية C43 (DE3) ΔcyoABCDE وتم تنقيه كما تم وصفه سابقا29. تم استخدام أوكسيداز بو3 المنقى مباشرة لإعادة التكوين وقياسات النشاط، أو وسم بأصباغ فلورية مثل ATTO 643 (هذه الدراسة) أو أصباغ ATTOالأخرى 1,15. بالنسبة للأصباغ شديدة المحبة للماء مثل ATTO 643، تم است...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
تتميز البوليمرسوم والحويصلات الهجينة بين البوليمر/الدهون بثبات كيميائي وميكانيكي معزز مقارنة بالحويصلات الدهنية التقليدية، مما يجعلها جذابة للغاية لتطبيقات تتراوح بين توصيل الأدوية والاستشعار الحيوي إلى المفاعلات النانوية والدقيقة والخلايا الصناعية. ومع ذلك، فإن بنية الغشاء المميزة وخصائصها الحيوية غالبا ما تمنع النقل المباشر للبروتوكولات المحسنة للحويصلات الدهنية إلى الأنظمة القائمة على البوليمرات 15,20,30.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
يعلن المؤلفون عدم وجود مصالح مالية متنافسة.
شكر وتقدير
تم إجراء هذا البحث ضمن مبادرة "مهمة إلى الحياة" لمدرسة ماكس بلانك، بدعم من مؤسسة ديتر شفارتز بالتعاون مع جمعية ماكس بلانك. نحن ممتنون لكلوديا بيدنارز على عزل وتنقية السيتوكروم بو3 أوكسيداز، ولآن كريستين وينريش لمساعدتها في تحضير الحويصلات والمجهر.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| نظام كروماتوجرافيا pure™ AKTA | Cytiva | 29018224 | |
| 18:1 Liss Rhod PE | Avanti Research | 810150 | |
| زجاج تغطية مقسوم إلى 8 خلايا | Cellvis | C8-1.5H-N | |
| مرشحات الطرد المركزي Amicon Ultra 0.5 مل | Sigma Aldrich | UFC5030 | |
| ATTO 643 NHS ester | ATTO-TEC | AD 643-31 | |
| Bio-Beads SM-2 | Bio-Rad | 1523920 | |
| Cholic acid-Na-salt (sodium cholate) | Serva | 361-09-1 | |
| Coenzyme Q1 | TargetMol | TGM-T19594 | |
| المجهر المجسم STELLARIS 5 | Leica Microsystems | 603810 | |
| DTT (Dithiothreitol) | Merck | 10197777001 | |
| Fine Tip Ultra Micro Pastette | Pastette | LW4243 | |
| HPTS (pyranine, 8-Hydroxypyrene-1,3,6-Trisulfonic Acid, Trisodium Salt) | Sigma Aldrich | 6358-69-6 | |
| شرائح زجاجية مكسوة بـ ITO (25×75×1.1 ملم، ≤20 أوم/متر مربع) | pgo | CEC020S | |
| برنامج LAS X | Leica | https://www.leica-microsystems.com/products/microscope-software/p/leica-las-x-ls/ | |
| Mini centrifuge MCF-2360 | LMS | 24572 | |
| Mini-extruder | Avanti Research | 610000 | |
| نظام Oxytherm+P | Hansatech Instruments | / | |
| منظف البلازما (سطح العمل) | Harrick Plasma | PDC-32G-2 | |
| غشاء البولي كربونات 0.1 ميكرومتر | Avanti Research | 610005 | |
| عازل سيليكون لختم الضغط (مستدير، قطر 20 ملم، عمق 1 ملم) | Grace Bio-Labs | 41161502 | |
| فواصل سيليكون (مستدير، قطر خارجي 24.2 ملم، قطر داخلي 14.3 ملم، عمق 1.8 ملم) | مصنوع في المختبر، مقطوع من صفيحة سيليكون | ||
| Soy PC (95%) | Avanti Research | 441601 | |
| Specord 50 PLUS spectrophotometer | Analytik Jena | 823-0200P-3 | |
| Superdex 200 10/300 GL column (طول العمود × القطر الداخلي 30 سم × 10 ملم) | Cytiva | 28-9909-44 | |
| مذبذب أنبوب الاختبار (2800 دورة في الدقيقة) | IKA Lab Dancer | 3365000 | |
| Thermomixer comfort 5355 | Eppendorf | 5355000.011 | |
| Xiameter OFX-5329 (PDMS-g-PEO؛ MW 3000) | Dow Corning | 000000000004109892 | |
| ZetaSizer Nano ZS | Malvern Panalytical | ZEN3600 |
المراجع
- Marušič N, et al. Constructing artificial respiratory chain in polymer compartments: Insights into the interplay between bo3 oxidase and the membrane. Proc Natl Acad Sci U S A. 2020;117(26):15006-17.
- Bermudez H, Brannan AK, Hammer DA, Bates FS, Discher DE. Molecular Weight Dependence of Polymersome Membrane Structure, Elasticity, and Stability. Macromolecules. 2002;35(21):8203-8.
- Otrin L, et al. Toward Artificial Mitochondrion: Mimicking Oxidative Phosphorylation in Polymer and Hybrid Membranes. Nano Lett. 2017;17(11):6816-21.
- Otrin L, et al. En route to dynamic life processes by SNARE-mediated fusion of polymer and hybrid membranes. Nat Commun. 2021;12(1):4972.
- Itel F, Najer A, Palivan CG, Meier W. Dynamics of Membrane Proteins within Synthetic Polymer Membranes with Large Hydrophobic Mismatch. Nano Lett. 2015;15(6):3871-8.
- Goers R, et al. Optimized reconstitution of membrane proteins into synthetic membranes. Commun Chem. 2018;1(1):35.
- Nardin C, Thoeni S, Widmer J, Winterhalter M, Meier W. Nanoreactors based on (polymerized) ABA-triblock copolymer vesicles. Chem Commun. 2000;(15):1433-4.
- Einfalt T, et al. Stimuli-Triggered Activity of Nanoreactors by Biomimetic Engineering Polymer Membranes. Nano Lett. 2015;15(11):7596-603.
- Ranquin A, Versées W, Meier W, Steyaert J, Van Gelder P. Therapeutic Nanoreactors: Combining Chemistry and Biology in a Novel Triblock Copolymer Drug Delivery System. Nano Lett. 2005;5(11):2220-4.
- Ihle S, et al. Nanocompartments with a pH release system based on an engineered OmpF channel protein. Soft Matter. 2011;7(2):532-9.
- Kumar M, et al. Highly permeable polymeric membranes based on the incorporation of the functional water channel protein Aquaporin Z. Proc Natl Acad Sci U S A. 2007;104(52):20719-20724.
- Choi HJ, Montemagno CD. Artificial Organelle: ATP Synthesis from Cellular Mimetic Polymersomes. Nano Lett. 2005;5(12):2538-42.
- Khan S,et al. Durable proteo-hybrid vesicles for the extended functional lifetime of membrane proteins in bionanotechnology. Chem Commun. 2016;52(73):11020-3.
- Kleineberg C, et al. Light-Driven ATP Regeneration in Diblock/Grafted Hybrid Vesicles. Chembiochem. 2020;21(15):2149-60.
- Otrin N, et al. Protein-Rich Rafts in Hybrid Polymer/Lipid Giant Unilamellar Vesicles. Biomacromolecules. 2024;25(2):778-91.
- Marušič N, et al. Increased efficiency of charge-mediated fusion in polymer/lipid hybrid membranes. Proc Natl Acad Sci U S A. 2022;119(20):e2122468119.
- Marušič N,et al. Fusion-Induced Growth of Biomimetic Polymersomes: Behavior of Poly(dimethylsiloxane)-Poly(ethylene oxide) Vesicles in Saline Solutions Under High Agitation. Macromol Rapid Commun. 2022;43(5):2100712.
- Rigaud JL, Pitard B, Levy D. Reconstitution of membrane proteins into liposomes: application to energy-transducing membrane proteins. Biochim Biophys Acta. 1995;1231(3):223-46.
- Catania R,et al. Detergent-Free Functionalization of Hybrid Vesicles with Membrane Proteins Using SMALPs. Macromolecules. 2022;55(9):3415-22.
- Otrin L. Bottom-up construction of the artificial mitochondrion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2021.
- Manneville JB, Bassereau P, Ramaswamy S, Prost J. Active membrane fluctuations studied by micropipet aspiration. Phys Rev E Stat Nonlin Soft Matter Phys. 2001;64(2 Pt 1):021908.
- Dezi M, Di Cicco A, Bassereau P, Lévy D. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Natl Acad Sci U S A. 2013;110(18):7276-81.
- Sjoholm J, et al. The lateral distance between a proton pump and ATP synthase determines the ATP-synthesis rate. Sci Rep. 2017;7(1):2926.
- Biner O, Schick T, Muller Y, von Ballmoos C. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 2016;590(14):2051-62.
- Girard P,et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 2004;87(1):419-29.
- Nordlund G, Brzezinski P, von Ballmoos C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 2014;5(1):4303.
- Otrin N. A Modular Platform for Growth of Hybrid and Polymer Membrane Systems by Vesicle Fusion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2022.
- Otrin L, et al. Artificial Organelles for Energy Regeneration. Adv Biosyst. 2019;3(6):1800323.
- Frericks HL, Zhou DH, Yap LL, Gennis RB, Rienstra CM. Magic-angle spinning solid-state NMR of a 144 kDa membrane protein complex: E. coli cytochrome bo3 oxidase. J Biomol NMR. 2006;36(1):55-71.
- Seneviratne R, et al. A reconstitution method for integral membrane proteins in hybrid lipid-polymer vesicles for enhanced functional durability. Methods. 2018;147:142-9.
- Aimon S,et al. Functional reconstitution of a voltage-gated potassium channel in giant unilamellar vesicles. PLoS One. 2011;6(10):e25529.
- Dolder N, Müller P, von Ballmoos C. Experimental platform for the functional investigation of membrane proteins in giant unilamellar vesicles. Soft Matter. 2022;18(31):5877-93.
- Zhao Z,et al. Super-Resolution Imaging of Highly Curved Membrane Structures in Giant Vesicles Encapsulating Molecular Condensates. AdvMater. 2022;34(4):2106633.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً