طريقة قابلة للتخصيص لإعطاء البروتينات المناعية المفرزة في دماغ الفأر الحي للتوصيف الزماني والمكاني للتفاعلات المناعية العصبية.
مقالة منهجية
التوصيل الموجه داخل القحف للجزيئات المناعية المفرزة لاستقصاء التفاعلات المناعية العصبية
في هذه المقالة
ملخص
الملخص
على الرغم من الاعتراف المتزايد بتأثير البروتينات المناعية المفرزة على وظائف الجهاز العصبي، إلا أن هناك عوائق تقنية لا تزال قائمة في تحديد ديناميكياتها الزمانية والمكانية ضمن البيئة المعقدة للدماغ. فعلى سبيل المثال، تفرز الخلايا الدبقية الصغيرة، وهي مجموعة من الخلايا المناعية الرئيسية في الدماغ، مجموعة متنوعة من العوامل التي تتفاعل مع العديد من الأهداف الخلوية المتنوعة. ويمكن للبروتينات المشتقة من الخلايا الدبقية الصغيرة أن ترسل إشارات إلى أنواع أخرى من الخلايا via آليات مثل الارتباط بمستقبلات السطح دون استيعاب داخلي، أو النقل الغشائي السلبي، أو الالتقام الخلوي، أو الاستيعاب بوساطة الإدخال الخلوي. نُقدم هنا طريقة للتوصيل الموضعي لبروتين مفرز مشتق من الخلايا الدبقية الصغيرة لتحليل آليات التفاعل الخلوي والنتائج الوظيفية اللاحقة in vivo. ونشرح كيفية تحضير عينات البروتين للتوصيل، وكيفية إجراء الإعطاء بالتوجيه التجسيمي للبروتين في مناطق الدماغ المستهدفة، وأفضل الممارسات لجمع وتحضير أنسجة الدماغ لتصور البروتينات الحساسة للتثبيت عن طريق الكيمياء النسيجية المناعية. يوفر هذا النهج إطاراً متعدد الاستخدامات للدراسات التي يتم التحكم فيها زمانياً ومكانياً للتواصل العصبي المناعي، مما يتيح الاستكشاف الميكانيكي لكيفية تنظيم البروتينات المشتقة من الجهاز المناعي لوظائف العصبونات والدماغ بشكل ديناميكي.
المقدمة
لقد ثبت مؤخراً فقط أن التواصل العصبي المناعي، أو الحوار الجزيئي بين الجهازين العصبي والمناعي، أمر أساسي لفهم الصحة والمرض. فالدماغ، الذي كان يُعتقد سابقاً أنه محمي إلى حد كبير من نشاط الجهاز المناعي1,2، يُعترف به الآن على أنه يحتوي على مناطق مناعية ديناميكية للغاية، مما يسمح للجهاز العصبي بإرسال واستقبال الإشارات المناعية في جميع أنحاء الجسم3. وغالباً ما يتم هذا التفاعل المتبادل والقوي ثنائي الاتجاه عبر خلايا ذات كفاءة مناعية تعيش إما في الدماغ أو عند واجهات الجهاز العصبي، مثل الضفيرة المشيمية، والسحايا، والمساحات حول الأوعية الدموية4. أما في نسيج الدماغ ذاته، فإن الإشارات المناعية يتم نقلها بشكل أساسي بواسطة الخلايا الدبقية الصغيرة، وهي البلاعم المقيمة في الأنسجة وطويلة العمر التي تستوطن الدماغ لأول مرة خلال التطور الجنيني. ورغم أنها غالباً ما تُدرس تجريبياً مع إيلاء اهتمام خاص لوظائفها في البلعمة، إلا أن الخلايا الدبقية الصغيرة تتفاعل أيضاً مع بيئاتها المباشرة وعبر مسافات طويلة من خلال إفراز مجموعة واسعة من العوامل المناعية5.
إن نمذجة الحالات المعقدة ومتعددة العوامل مثل العدوى والإصابات والأمراض in vivo، رغم فائدتها في توفير فهم شامل للجهاز العصبي تحت تأثير الإجهاد، تؤدي إلى سلسلة من العوامل ذات عواقب واسعة ومتنوعة قد يصعب فك الارتباط بينها. علاوة على ذلك، ونظراً للتغاير العالي بين الخلايا في مناطق الدماغ المختلفة، لا يزال تحديد الإطلاق المسبب والتأثيرات المرتبطة بعوامل فردية أمراً صعباً. وبينما مكنت أدوات مثل النواقل الفيروسية البطيئة والنواقل الفيروسية المرتبطة بالأدينو، والتي تسمح بالإفراط في التعبير عن عوامل محددة بعد عدوى دقيقة الموقع، من استقصاء أدوار العوامل المفرزة من خلايا الدماغ الأخرى، مثل العصبونات والخلايا النجمية، في سياقات متنوعة، إلا أن الخلايا الدبقية الصغيرة لا تزال صعبة التعديل بشكل محدد وقوي بهذه الطريقة6. وبناءً على ذلك، فإن القدرة على إيصال جزيئات الإشارة المشتقة من الخلايا الدبقية الصغيرة إلى موقع محدد في الدماغ توفر طريقة مفيدة لفصل أدوارها الدقيقة وعواقبها في سياقات مختلفة.
الهدف من هذه الطريقة هو إيصال العوامل المشتقة من الخلايا الدبقية الصغيرة إلى دماغ فأر حي مكانياً وزمانياً، وذلك للسماح بالاستقصاء اللاحق للتأثيرات الوظيفية لبروتين أو جزيء معين. علاوة على ذلك، فإن طريقة الإعطاء داخل القحف هذه قابلة للتكيف مع العديد من السياقات والتساؤلات الأخرى، مثل عبر الإعطاء المشترك لعوامل متعددة، مثل العوامل المناعية المتفاعلة أو المثبطات، أو استقصاء استجابات الأنسجة عبر المدى الزمني المراد دراسته. وبينما يصف هذا البروتوكول جمع الأنسجة وتحضيرها للنقاط النهائية الكيميائية النسيجية المناعية، يمكن اقتران مجموعة متنوعة من النقاط النهائية الدماغية الأخرى بطريقة الإعطاء هذه، مثل جمع عينات نسيجية مثقوبة مجمدة طازجة من منطقة دماغية معينة لإجراء تفاعل البوليميراز المتسلسل الكمي (qPCR) أو قياس وفرة البروتين. عبر أو إجراء تحليل اللطخة الغربية (Western blot) أو مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA)، أو تسجيل النشاط الفيزيولوجي الكهربائي للعصبونات في منطقة محقونة من الدماغ.
البروتوكول
تُجرى جميع الإجراءات التي تشمل الحيوانات وفقًا لدليل المعاهد الوطنية للصحة لرعاية واستخدام حيوانات المختبر، وبموجب بروتوكولات معتمدة من قبل اللجنة المؤسسية لرعاية واستخدام الحيوانات (IACUC) في المؤسسة البحثية. وقد تمت مراجعة جميع الإجراءات الموضحة هنا والموافقة عليها من قبل لجنة IACUC في جامعة Duke. والمواد والكواشف والمعدات المستخدمة مدرجة في جدول المواد.
1. (اختياري) تحضير المادة المحقونة مع العلامة المطلوبة
- قم بشراء أو عزل أو إنشاء نسخة منقاة من البروتين المناعي أو الجزيء المطلوب (راجع قسم Discussion للحصول على إرشادات بشأن توصيات تحسين البروتين والتحقق من صحته).
- عند الحاجة، حدد أفضل استراتيجية لوسم البروتين بناءً على بنيته الكيميائية. على سبيل المثال، إذا كانت هناك نطاقات أو مناطق محددة من البروتين ضرورية لوظيفته، فتجنب الاقتران في هذه المواقع. يجب إجراء التحقق من الوظيفة الطبيعية للبروتين بعد عملية الوسم.
ملاحظة: بالنسبة للبروتينات المنقاة، تشمل مناهج الوسم الكيميائي الشائعة الاقتران بمجموعات الثيول، وعادةً ما يكون ذلك على بقايا السيستين (صبغات maleimide أو iodoacetamide) أو بمجموعات الأمين، وعادةً ما يكون ذلك على بقايا الليسين (صبغات N-hydroxysuccinimide (NHS) ester أو isothiocyanate) وفقًا لتعليمات الشركة المصنعة. يمكن أيضًا شراء أطقم من موردين قياسيين لإجراء عملية الاقتران.- تأكد من إزالة أي صبغة حرة، وذلك عن طريق تدوير البروتينات والصبغة من خلال عمود بحجم مناسب لالتقاط البروتين والسماح بتدفق أي صبغة غير مرتبطة قبل الاستخدام.
- بدلاً من ذلك، يمكن وسم البروتينات المطلوبة جينيًا للكشف عنها، ثم التعبير عنها في الخلايا المستهدفة، ومن ثم تنقيتها. يمكن دمج الوسم مباشرة مع البروتين أو ربطه من خلال رابط مرن، وتشمل الخيارات الشائعة البروتينات الفلورية (مثل eGFP و tdTomato و mCherry) وعلامات الوسم الذاتي (مثل HaloTag و SNAP-tag).
- قم بتقسيم البروتينات إلى حصص (Aliquot) لتجنب دورات التجميد والذوبان التي قد تسبب تلفًا. وللحصول على أفضل النتائج، تحقق من الوظيفة الطبيعية للبروتين لكل عدد من دورات التجميد والذوبان قبل الاستخدام in vivo. تُحفظ في درجة حرارة -80 °C.
ملاحظة: قد يكون البروتين غير الموسوم كافيًا في الحالات التي لا تتطلب التمييز بين البروتين الداخلي والخارجي (على سبيل المثال، الحقن في نموذج قارض معطل جينيًا knockout). يجب إجراء اختبارات تجريبية لتحسين الظروف الاختبارية.
2. تجهيز المعدات للإجراء الجراحي
- اجمع الأدوات الجراحية التالية في حاوية صالحة للتعقيم بالبخار (autoclave) مع شريط مؤشر البخار: مقبض المشرط، والملاقط، ومقصات صغيرة، ومهمزة شريانية (hemostat)، وريشة مثقاب (1.35 mm)، وغطاء جراحي لتقنية التعقيم المقتصرة على الرؤوس. عقم الأدوات الجراحية عبر جهاز التعقيم بالبخار (autoclave) عند 121 °C وضغط 15–20 psi لمدة 30 min.
- المواد الإضافية المطلوبة: مساحات قطنية معقمة، ومحلول بوفيدون أيودين، وإيثانول 70%، ومحلول ملحي 0.9%، وأيزوفلوران، وماصات دقيقة مسحوبة زجاجياً (glass-pulled micropipettes)، وشفرات مشرط معقمة، وكريم لإزالة الشعر، ومزلق للعين، ولاصق أنسجة أو خيوط جراحية، ووسادة تدفئة، وميزان، وأدوية محضرة وحقن أنسولين، وسجل جراحي.
- لتحضير الماصات الدقيقة المسحوبة زجاجياً، اختر أنبوباً شعرياً زجاجياً بقطر خارجي يتناسب مع الحقن، وعادة ما يكون حوالي 1.0 mm، وقطر داخلي يتراوح بين 0.5 mm و 0.8 mm. ضعه في جهاز سحب الماصات، ثم اسحبه باستخدام إعدادات تؤدي إلى الحصول على رأس مستدق ضيق وقوي (تعتمد هذه الإعدادات على الجهاز المستخدم وتتطلب تحسيناً فردياً).
ملاحظة: غالباً ما تساعد درجة الحرارة المنخفضة في تجنب الحصول على رأس طويل ومرن قد ينثني عند الدخول إلى النسيج الحشوي (parenchyma)، كما تساعد قوة السحب المنخفضة أو المتوسطة في تجنب فتحة رأس ضيقة جداً، مما قد يسبب انسداداً أو مقاومة أثناء الحقن. استخدم مجهراً تشريحياً لفحص جميع رؤوس الماصات المسحوبة، واستخدم ملاقط دقيقة لقص فتحة الرأس برفق لترك قطر داخلي للفتحة يبلغ حوالي 20 µm. في حال استخدام أداة شطب (beveling instrument)، استخدم زاوية أقل من 35°. - انقل الأدوات المعقمة والمواد الإضافية والبروتين المخصص للحقن المبرد على الثلج إلى منطقة الجراحة (Figure 1A). أخرج الأدوات المعقمة بعناية على منشفة جراحية، مع وضع رؤوس جميع الأدوات في مركز المجال المعقم المحدد (Figure 1B,C). استخدم المهمزة الشريانية لوضع ريشة المثقاب في مركز المجال. ثبت شفرة مشرط معقمة على المقبض وأبقِ طرف الشفرة داخل المجال المعقم.
- قم بتسخين وسادة التدفئة مسبقاً إلى 37 °C وشغل جهاز تعقيم الخرز (bead sterilizer) في حال إجراء عدة عمليات جراحية.
- املأ رأس الماصة الدقيقة بالزيت المعدني باستخدام إبرة ذات عيار دقيق، مع التأكد من عدم وجود فقاعات على طول الماصة الزجاجية. ركب الماصة الزجاجية على الحقن الدقيق، واطرد بعناية حجم البروتين الذي ستقوم بتحميله. قم بتحميل البروتين المطلوب بحجم بناءً على التوصيات المنشورة7 في الحقن، ثم ضع الحقن جانباً.
3. الإجراء الجراحي بالتوجيه المجسم
ملاحظة: أُجريت جميع العمليات الجراحية في جناح جراحي جيد التهوية، وارتدى جميع الموظفين معدات الوقاية الشخصية المكونة من القفازات، وأقنعة الوجه، وأغطية الشعر، وأغطية الأحذية، والمآزر الجراحية. يشكل التعرض لغاز Isoflurane خطراً صحياً، وبالتالي يتطلب نظاماً لسحب الغازات، مثل عبوات الفحم المنشط، والتي يجب وزنها قبل وبعد استخدام isoflurane. تأكد من أن جميع المعدات، مثل مبخر التخدير، وأنظمة التهوية، ومعدات سحب الغازات، معتمدة ومعايرة بشكل صحيح قبل الاستخدام.
- تأكد من ملء مبخر التخدير بالحجم المناسب من isoflurane واضبط تدفق الأكسجين على معدل 1 L/min. سجل وزن الفأر قبل وضعه في غرفة isoflurane مضبوطة على معدل توصيل 3.5%–4%. سجل وقت بدء الجراحة.
- راقب الحيوان للتأكد من انخفاض معدل التنفس، ثم أكد التخدير الكامل من خلال غياب منعكس قرص إصبع القدم. بمجرد التخدير الكامل، انقل الحيوان إلى وسادة تسخين دافئة على جهاز stereotax لتلقي تدفق مستمر من isoflurane بنسبة 2% وبمعدل 1 L/min عبر قمع أنفي. اضبط تدفق isoflurane حسب الحاجة بناءً على معدل تنفس الحيوان.
- ضع طبقة سخية من مرطب العين بلطف على كل عين. راقب المرطب طوال فترة الجراحة للتأكد من بقائه مغطياً للعينين بالكامل. أعد وضعه عند الحاجة.
- باستخدام مسحة قطنية معقمة، ضع كريم إزالة الشعر على أعلى الرأس ودلكه في الفراء. اتبع وضع كريم إزالة الشعر باستخدام مسحات مغموسة في saline بتركيز 0.9% لإزالة كل من الكريم وفراء الرأس. كرر عملية وضع وإزالة كريم إزالة الشعر حتى تتم إزالة جميع الفراء من أعلى الرأس.
ملاحظة: احذر من وضع كريم إزالة الشعر على الجلد المكشوف الذي تمت إزالة الفراء منه بالفعل، أو ترك الكريم مدلكاً في الفراء لأكثر من 3 min تقريباً في المرة الواحدة. يمكن أن يؤدي التعرض المطول لكريم إزالة الشعر إلى حروق جلدية. - أعطِ كمية مناسبة من المسكنات قبل العملية بناءً على وزن الحيوان. تتطلب الجرعة المسكنة الدقيقة وطريقة الإعطاء والتوقيت مراجعة وموافقة من IACUC. استخدمت هذه الدراسة 4 mg/kg من meloxicam عبر حقن تحت الجلد، تم إعطاؤها في بداية الجراحة.
- ثبّت رأس الحيوان بإحكام بين قضبان الأذن (earbars)، مع الحفاظ على الجمجمة مسطحة ومتساوية قدر الإمكان. اضغط بلطف على رأس الحيوان للتأكد من عدم وجود حركة. إذا مال الرأس أو تحرك، أعد تثبيت قضبان الأذن حتى يستقر.
- باستخدام مسحات قطنية معقمة، ضع betadine على الرأس بحركة دائرية من الداخل إلى الخارج، ثم كرر العملية باستخدام ethanol بتركيز 70%.
- كرر وضع povidone-iodine، ثم ضع ethanol بتركيز 70% مرتين إضافيتين، ليصبح المجموع 3 مرات من التطبيق.
ملاحظة: يتم التعامل مع هذه المنطقة الآن كحقل معقم، ويُسمح فقط بدخول الأدوات المعقمة إلى هذه المنطقة. - استخدم مشرطاً لإجراء شق عمودي من أعلى العينين تقريباً إلى منتصف المسافة بين الأذنين في حركة واحدة سلسة. استخدم مسحة قطنية معقمة لفصل الجلد بلطف وكشف الجمجمة. تأكد من إمكانية رؤية كل من bregma و lambda، ثم تخلص من شفرة المشرط بعناية في حاوية التخلص من الأدوات الحادة المناسبة.
- استخدم ملاقط مسننة لتركيب ريشة المثقاب المعقمة في المثقاب. ثبت المثقاب في ذراع stereotax وضع المثقاب فوق مركز bregma، بحيث يلامس الجمجمة فقط. قم بتصفير (Zero) الموضع Z على جهاز stereotax.
- لإجراء إجراء مراقبة جودة لوضع الرأس الصحيح:
- بعد التصفير عند bregma، حرك ريشة المثقاب إلى lambda، مع تحريك الموضع Z مرة أخرى ليلامس سطح الجمجمة فقط. سجل الموضع Z عند lambda.
- حرك ريشة المثقاب للأعلى مجدداً، ثم بمقدار -2.1 mm في الموضع Y، وهو ما يجب أن يكون في منتصف المسافة تقريباً بين bregma و lambda. حرك الموضع X بمقدار -1.5 mm و +1.5 mm على كلا الجانبين، مع تسجيل الموضع Z في كلا الموقعين عند ملامسة الجمجمة فقط.
- تأكد من أن كل موضع Z مسجل هو <0.2 mm. اضبط حسب الحاجة.
- صفر الإحداثيات مرة أخرى عند bregma، ثم حرك ذراع stereotax إلى إحداثيات (X,Y) المطلوبة.
ملاحظة: غالباً ما تستخدم أطالس إحداثيات stereotaxic للفئران المنشورة فئران مرجعية بوزن بالغ شاب طبيعي (~28 g). قد لا تتناسب الفئران الأكبر أو الأصغر حجماً تماماً مع هذه الإحداثيات المرجعية. يوصى بإجراء حقن تجريبية بصبغة للتأكد من دقة الإحداثيات قبل الإعطاء التجريبي للبروتين. لتعديل الإحداثيات، يمكن النظر في استخدام نسبة تصحيح bregma-lambda، وذلك بضرب المسافة المقاسة بالـ mm من bregma إلى lambda في الفأر في الإحداثي الموصى به في الأطلس المرجعي، ثم قسمة تلك النتيجة على مسافة bregma-lambda في الأطلس المرجعي، كنقطة بداية. - شغل المثقاب واخفض الذراع ببطء في البعد Z لإحداث اتصال مع الجمجمة. احفر بعناية عبر الجمجمة، مع التأكد من عدم ملامسة أو إتلاف أنسجة الدماغ الموجودة تحتها. سيظهر سطح الدماغ لامعاً ورطباً بمجرد حفر الثقب بشكل صحيح.
ملاحظة: يساعد الحفر المتقطع وسرعة المثقاب المنخفضة (1000 rpm) في تقليل مخاطر الحرارة الناتجة عن الاحتكاك المفرط، كما أن وضع محلول saline معقم أثناء الحفر أو بعده يقلل من تطاير غبار العظام. استخدام أدوات الوقاية الشخصية (قناع الوجه، حماية العينين) أمر مهم لتجنب المخاطر التي قد يتعرض لها الباحث. - كرر الخطوة 3.12 حسب الحاجة إذا كان يتم إجراء عمليات حقن في مواقع متعددة.
- أزل المثقاب من ذراع stereotax. في حالة إجراء أكثر من جراحة واحدة، استخدم الملاقط المسننة المعقمة لإزالة ريشة المثقاب من المثقاب ووضعها في جهاز تعقيم الخرز (bead sterilizer). بعد 10 s، أزل ريشة المثقاب من الخرز وضعها في الحقل المعقم على المنشفة الجراحية.
- اغمس مسحة قطنية معقمة في saline بتركيز 0.9% واستخدمها لترطيب الجمجمة المكشوفة ومسح أي غبار نتج عن الحفر. افحص مرطب عين الحيوان وضع المزيد منه إذا لزم الأمر.
4. حقن البروتين المستهدف والتعافي الجراحي
- ثبّت المحقن المحمل في ذراع الجهاز المجسم (stereotax arm). أعد تصفير الإحداثيات عند نقطة البريغما (bregma) واضبطها على إحداثيات (X,Y) المطلوبة. اخفض طرف المحقن عبر الثقب المحفور في الجمجمة حتى يصبح ملامساً لسطح الدماغ، أسفل الجمجمة مباشرة. صفّر المستوى Z.
- أدخل طرف المحقن ببطء شديد لتتجاوز إحداثي Z المطلوب بقليل (حوالي -0.2 mm إضافية)، ثم أعده للأعلى حتى يصل إلى الإحداثي الصحيح.
- احقن البروتين المطلوب ببطء، بمعدل لا يتجاوز 500 nL/min. سجل وقت الحقن.
ملاحظة: ضع في الاعتبار بعناية أحجام المواد المحقونة لتحقيق الاستهداف المكاني المطلوب مع تجنب إصابة الأنسجة وتلفها. يجب إجراء اختبارات تجريبية لتحسين الحجم ومعدل التوصيل لكل منطقة من مناطق الاهتمام (راجع قسم Discussion لمزيد من التفاصيل). - لمنع التدفق العكسي للمادة المحقونة، أبقِ المحقن في مكانه لمدة 5-10 دقائق إضافية بعد انتهاء عملية الحقن.
- ارفع المحقن ببطء إلى خارج الدماغ، وذلك على مدار 1-2 دقيقة.
- كرر الخطوات من 4.1 إلى 4.5 في حال إجراء عمليات حقن متعددة.
- قم بإزالة المحقن من الجهاز المجسم عند الانتهاء.
- استخدم مسحة قطنية معقمة مغموسة في محلول ملحي لترطيب موقع الشق الجراحي. ضع البوبيفاكائين (bupivacaine) أو أي مخدر موضعي مفضل آخر موضعياً على الجلد.
- استخدم ملقطاً معقماً لإغلاق موقع الشق، ثم ضع لاصق الأنسجة (أو أي طرق مفضلة أخرى، مثل الغرز الجراحية أو دبابيس الجروح) لإغلاق الجرح.
ملاحظة: احذر من وصول لاصق الأنسجة إلى عيني الحيوان أو أي جزء من الجلد بخلاف الشق نفسه. يمكن استخدام طرف ماصة معقم وماصة لتطبيق لاصق الأنسجة بطريقة أكثر تحكماً من الموزعات المرفقة من قبل الشركة المصنعة. - قم بفك قضبان الأذن ومخروط الأنف، وضع الحيوان في قفص نظيف ودافئ للتعافي. سجل وقت إخراج الحيوان من تخدير الإيزوفلورين (isoflurane).
- راقب الحيوان وسجل الوقت الذي لوحظ فيه وقوف الحيوان لأول مرة. وبمجرد استعادة القدرة الكاملة على الحركة لمدة 30 min على الأقل، أعد الحيوان إلى قفصه النظيف مع توفير رعاية إضافية، مثل الهيدروجيل (hydrogel) والطعام المطحون المرطب.
ملاحظة: ما لم يتم جمع أنسجة من الحيوان المتعافي بشكل حاد (خلال 24 h)، يجب وزن الحيوان ومراقبته مرة واحدة يومياً خلال الأسبوع الأول بعد الجراحة لتقييم أي تفاعلات عكسية، والتأكد من التئام الجرح بشكل طبيعي والتعافي الصحي. يجب إعطاء المسكنات بعد الجراحة وفقاً للبروتوكولات التي راجعتها ووافقت عليها لجنة IACUC؛ حيث تم إعطاء 4 mg/kg من الميلوكسيكام (meloxicam) تحت الجلد كل 24 h خلال الأيام الثلاثة الأولى بعد الجراحة. يجب تسجيل جميع الملاحظات في سجل المختبر. إذا لوحظ أن الحيوان يظهر سلوكاً مرضياً، مثل انخفاض القدرة على الحركة، أو فقدان وزن بنسبة >15% من وزن ما قبل الجراحة، أو أي مؤشرات أخرى على سوء الحالة الصحية، يجب إما الاتصال بطبيب بيطري للاستشارة، أو التضحية بالحيوان بطريقة رحيمة واستبعاده من الدراسة.
5. تحضير النسيج لإجراء الكيمياء النسيجية المناعية
- جمّع المواد التالية: 1x PBS، وملاقط، ومقصات صغيرة، ومحقنة سعة 30 mL أو مضخة تروية، وإبرة فراشة قياس 26-gauge، وأنبوبين مخروطيين سعة 15 mL، ومحلول 4% بارافورمالدهيد (PFA) في PBS، وثلاثة أوعية وزن صغيرة (لغسل PFA من الأنسجة)، ومحلول 30% سكروز في PBS.
ملاحظة: مادة PFA مسرطنة وتطلق أبخرة سامة تتطلب تعاملاً وتخلصاً خاصاً. يجب إجراء جميع عمليات تحضير PFA واستخدامه والتخلص منه داخل خزانة استخلاص كيميائي أو كابينة سلامة بيولوجية. يجب وضع جميع نفايات PFA، بما في ذلك النفايات السائلة وأي مواد صلبة لامست PFA (مثل رؤوس الماصات، والأنابيب، وأوعية الوزن، إلخ)، في حاويات النفايات الخطرة وفقاً لما تحدده المؤسسة التي يتم فيها العمل. - اتبع الإرشادات المؤسسية الخاصة بإجراءات القتل الرحيم. وبمجرد التأكيد، انقل الحيوان فوق صينية أو دلو وافتح التجويف البطني للحيوان باستخدام الملاقط والمقصات لكشف القلب.
- قم بإجراء تروية عبر القلب للحيوان باستخدام 1x PBS بارد بواسطة مضخة أو يدوياً باستخدام محقنة سعة 30 mL.
ملاحظة: يجب أن تكون الفترة الزمنية بين القتل والتروية قصيرة قدر الإمكان لتجنب التجلط، لذا يجب إجراء العملية على حيوان واحد في كل مرة إذا كنت تجمع أنسجة من عدة فئران. - أزل الدماغ كاملاً من الجمجمة وانقله إلى أنبوب مخروطي سعة 15 mL يحتوي على محلول 4% PFA لمدة لا تزيد عن 2 h. سجل وقت وضع كل دماغ في PFA للتأكد من عدم تثبيت الأنسجة بشكل مفرط.
ملاحظة: يجب اختبار تحسين تثبيت الأنسجة تجريبياً للأهداف المراد دراستها. على سبيل المثال، تفاعلات C1q مع معقدات البروتين النووي الريبوزي العصبونية تكون حساسة للتثبيت المفرط8. يرجى الرجوع إلى قسم المناقشة لمزيد من التفاصيل حول اختيار طريقة التثبيت المناسبة. - بعد فترة التثبيت المناسبة للأنسجة، قم بإجراء ثلاث عمليات غسل في PBS لإزالة PFA المتبقي من الأنسجة.
- انقل الدماغ إلى أنبوب مخروطي سعة 15 mL يحتوي على محلول 30% سكروز في PBS، واحفظه عند درجة حرارة 4 °C حتى يغرق الدماغ إلى القاع. وبشكل عام، يستغرق ذلك من 1 إلى 3 أيام.
- لطمر الأدمغة المثبتة، جمّع المواد التالية: 30% سكروز في PBS، ووسط طمر للتجميد، وقوالب تجميد مخصصة ذات حجم مناسب (مثل 22 mm x 22 mm)، وشفرة حلاقة، وملاقط، وماصة سيرولوجية، ورؤوس ماصات.
- امزج وسط الطمر للتجميد ومحلول 30% سكروز بنسبة 1:1 لتحضير محلول الطمر. في حال استخدام قوالب 22 mm x 22 mm، يلزم حوالي 5 mL من محلول الطمر لكل قالب. استخدم جهاز خض (Vortex) جيداً لدمج اللزوجات المختلفة.
- لإعداد مقاطع سهمية للدماغ، استخدم شفرة حلاقة لقطع الدماغ على طول الخط المتوسط (الشكل 2A). ضع علامة على كل قالب نسيجي بتفاصيل العينة، بما في ذلك نصف الكرة المخية. يمكن وضع أنصاف الكرات المخية في قوالب منفصلة أو تركيبها معاً، حسب التفضيل، بحيث يكون الخط المتوسط مواجهاً لقاع القالب (الشكل 2B).
- أضف حجماً مناسباً من محلول الطمر لإحاطة أنسجة الدماغ وغمرها بالكامل. اترك القوالب المعبأة في درجة حرارة الغرفة لمدة 1 h.
ملاحظة: لا بأس إذا كان محلول الطمر لا يزال يحتوي على فقاعات كثيرة نتيجة الخض؛ حيث تتيح فترة الحضانة لمدة 1 h وقتاً لتلاشي هذه الفقاعات. - جهز الثلج الجاف وضع رفاً أو صفيحة معدنية مسطحة فوق الثلج الجاف لإنشاء سطح مستوٍ للتجميد.
- انقل كل قالب معبأ برفق ليرتكز بشكل مسطح قدر الإمكان على الثلج الجاف. استخدم الملاقط بعد نقل القوالب وقبل بدء التجميد للتأكد من أن الأدمغة لا تزال في وضعها الصحيح. بمجرد أن يصبح محلول الطمر عتماً تماماً، يكون قد تجمد كلياً، وعندها يمكن نقل الأنسجة المطعمة إلى درجة حرارة -80 °C حتى يحين موعد إجراء الكيمياء النسيجية المناعية (الشكل 2C).
- استخدم جهاز الميكروتوم المجمد (درجة حرارة الغرفة: -20 إلى -25 °C، درجة حرارة الرأس: -15 إلى -18 °C) لجمع مقاطع سهمية بسماكة 15–40 µm على شرائح مشحونة، مع التأكد من ترك مسافات كافية للسماح بوضع حاجز من قلم الباباي (pap pen). يمكن توزيع ثلاثة مقاطع سهمية بمسافات جيدة على شريحة واحدة.
ملاحظة: عند تصوير بروتين حساس، أو بروتين غير معروف الحساسية، اجمع فقط المقاطع اللازمة لتجربة الكيمياء النسيجية المناعية، وأجرِ التجربة في نفس اليوم. يمكن حفظ الأنسجة المطعمة وإعادة تجميدها عند درجة حرارة -80°C للتجارب المستقبلية. بدلاً من ذلك، يمكن تخزين الشرائح التي تحتوي على مقاطع نسيجية في صناديق الشرائح عند درجة حرارة -80°C.
6. إجراء الكيمياء النسيجية المناعية للبروتين المحقون
- جمع المواد اللازمة للكيمياء النسيجية المناعية: 1x TBS، وقلم pap، وسابونين (saponin)، وألبومين المصل البقري (BSA)، والأجسام المضادة الأولية المطلوبة، والأجسام المضادة الثانوية، ومطفي التألق الذاتي القائم على Sudan Black B، وإيثانول 70%، ووسيط تثبيت يحتوي على DAPI، وأغطية شرائح (coverslips)، وطلاء أظافر.
ملاحظة: غالبًا ما تحتوي محاليل إطفاء التألق الذاتي المتاحة تجاريًا على ثنائي ميثيل فورماميد (DMF)، وهو ما يتطلب حذرًا في الاستخدام والتخلص منه. لا تتعامل معه بدون قفازات، واجمع أي محلول مستخدم في حاوية نفايات عضوية وفقًا لسياسات المؤسسة التي يتم فيها العمل. - استخدم ماصة نقل لوضع 1x TBS على مقاطع الأنسجة الموجودة على الشريحة لغسلها لمدة 10 min.
- اشفط غسول 1x TBS، ثم استخدم قلم pap لوضع حاجز كاره للماء حول كل مقطع نسيجي.
ملاحظة: القيام بذلك بعد أول غسلة بـ 1x TBS يساعد في إزالة محلول التضمين الزائد الذي قد يلتصق بالشرائح ويقلل من فعالية الحاجز. استخدم مناديل مسح لإزالة المحلول الزائد قبل وضع الحاجز. ومع ذلك، احذر من ترك النسيج المعاد ترطيبه يجف. - كرر غسل 1x TBS لمدة 10 min مرتين، ليصبح المجموع 3 غسلات.
- تحضير محلول النفاذية: أضف سابونين بنسبة 0.1% إلى 1x TBS. يُستخدم خلال أسبوعين من التحضير. ضع حوالي 100 µL على كل مقطع وحضّنه لمدة 10 min في درجة حرارة الغرفة.
- تحضير محلول الحجب: أضف سابونين بنسبة 0.1% و BSA بنسبة 1% إلى 1x TBS. سيُستخدم محلول الحجب أيضًا للمحاليل الأولية والثانوية، لذا قم بتحضير كمية إضافية واحفظها في درجة حرارة 4 °C. يُستخدم خلال أسبوعين من التحضير. اشفط محلول النفاذية وضع حوالي 100 µL من محلول الحجب على كل مقطع. حضّنه في درجة حرارة الغرفة لمدة 1 h.
- تحضير المحلول الأولي: أضف الأجسام المضادة الأولية إلى محلول الحجب. ابدأ بتركيز 1:500 من الجسم المضاد الأولي، مع الضبط بناءً على النتائج. اشفط محلول الحجب، وضع حوالي 100 µL من المحلول الأولي على كل مقطع.
ملاحظة: لتعزيز إشارة التألق الداخلية لبروتين مستهدف، يمكن إجراء تضخيم باستخدام جسم مضاد أولي ضد الوسم (على سبيل المثال، الجسم المضاد anti-GFP). - احفظ الشرائح في المحلول الأولي طوال الليل في درجة حرارة 4 °C.
ملاحظة: لتجنب التبخر طوال الليل، تأكد من وضع كمية وافرة من المحلول الأولي على كل مقطع وإضافة رطوبة إضافية إلى مكان تخزين الشرائح. - اغسل المحلول الأولي عن طريق الغسل ثلاث مرات في 1x TBS لمدة 10 min في درجة حرارة الغرفة.
- تحضير المحلول الثانوي: أضف الأجسام المضادة الثانوية إلى محلول الحجب. ابدأ بتركيز 1:200 من الجسم المضاد الثانوي، مع الضبط حسب الحاجة. ضع حوالي 100 µL من المحلول على كل مقطع نسيجي، وحضّنه لمدة 1 h في درجة حرارة الغرفة، مع تغطيته لحمايته من الضوء.
ملاحظة: في هذه الخطوة، يجب أن تظل الشرائح محمية من الضوء. - أزل المحلول الثانوي بالغسل باستخدام 1x TBS لمدة 10 min في درجة حرارة الغرفة.
- حضّر محلول إطفاء التألق الذاتي حديثًا وفقًا لتعليمات الشركة المصنعة. حضّر محلول عمل 1x عن طريق تخفيف محلول الإطفاء 20x في إيثانول 70% من الدرجة الجزيئية.
- شريحة واحدة في كل مرة، اشفط 1x TBS، وضع محلول الإطفاء 1x. قم بتدوير الشريحة بلطف لمدة 20–30 s، مما يسمح للمحلول بالتحرك حول مقاطع الأنسجة.
- تخلص من محلول الإطفاء في حاوية نفايات، ثم ضع TBS باستخدام ماصة نقل على كل مقطع، وتخلص من TBS في حاوية النفايات، ثم كرر غسلات TBS بسرعة حتى يصبح TBS صافيًا (عادة ما تكون 2–3 مرات كافية).
- ضع 1x TBS على المقطع لمنعه من الجفاف قبل تكرار خطوات محلول الإطفاء لكل شريحة.
- شريحة واحدة في كل مرة، اشفط TBS تمامًا، ثم ضع قطرة واحدة على الأقل من وسيط التثبيت المحتوي على DAPI على كل مقطع نسيجي. ضع غطاء شريحة على الشريحة وأغلق حواف الغطاء بطلاء الأظافر لمنع أي تبخر لوسيط التثبيت أو تحرك غطاء الشريحة. كرر العملية مع جميع الشرائح.
- احفظ الشرائح في درجة حرارة -20 °C للتخزين طويل الأمد إذا لم يتم التصوير فورًا.
النتائج
يعد C1q بروتيناً كبيراً (~450 kD) يتم التعبير عنه بدرجة عالية في جميع أنحاء الجسم، وله أدوار محددة جيداً في الجهاز المناعي الفطري كعضو رئيسي في المسار الكلاسيكي للمتممة. ومع ذلك، لا تزال الأدوار الوظيفية لـ C1q في الدماغ قيد البحث. يتم إنتاج C1q في الدماغ وإفرازه بشكل أساسي من الخلايا الدبقية الصغيرة، وهي مجموعة الخلايا المناعية المقيمة في الدماغ9. وقد تم إثبات دور C1q بشكل متكرر في عمليات مثل الإزالة التشابكية خلال التطور الطبيعي للدماغ، والتعلم والذاكرة، وفي سياقات المرض10,11,12,13,14. كما لوحظ تراكم C1q داخل الهياكل العصبية أو بجوارها مباشرة مع تقدم الدماغ في السن، وذلك في كل من القوارض والرئيسيات غير البشرية9,15,16. يهتم مختبرنا بالتبعات الوظيفية لتراكم C1q في الدماغ أثناء الشيخوخة. وقد اكتشفت هذه الدراسة أن C1q يتفاعل مع البروتينات داخل الخلوية العصبية في القوارض البالغة والمسنة، بما في ذلك البروتينات المرتبطة بـ RNA8. ونظراً لأنه قد تم إثبات قيام الخلايا التائية سابقاً بامتصاص C1q المشتق من أنواع خلوية أخرى17، فقد قمنا بتحديد ما إذا كانت الخلايا العصبية قادرة أيضاً على امتصاص C1q خارجي المنشأ in vivo.
أُجريت في هذه الدراسة أولاً حقنات أحادية الجانب داخل البطينات الدماغية (ICV) بـ 2 µL من بروتين C1q في ذكور فئران تبلغ من العمر 3 أشهر. ونظراً لأن بروتين C1q يُعبر عنه في دماغ البالغين من النوع البري، فقد اتبعنا نهجين: الأول، حقن بروتين C1q في فأر من نوع C1q -/- (معطل جينياً)، والثاني، وسم بروتين C1q فلوريسنتياً عن طريق الاقتران بـ 594-maleimide للتمكن من التمييز بين بروتين C1q الأصلي والخارجي في حيوان من نوع C1q +/+ (النوع البري). تم إعطاء البروتين بتركيز 1 mg/mL، معلقاً في محلول منظم مكون من 10 mM HEPES و 300 mM NaCl و pH 7.2. استُخدمت الإحداثيات التجسيمية التالية للحقن داخل البطينات الدماغية في نصف الكرة المخية الأيسر: X = +1.0 mm و Y = -0.4 mm و Z = -2.5 mm، وحُقن الحجم بمعدل 500 nL/min. ولتقليل الارتجاع، تُرِكت الإبرة الزجاجية المسحوبة المستخدمة في الحقن في مكانها لمدة 5 min بعد توقف الحقن قبل إزالتها. جُمعت الأنسجة بعد ساعة واحدة من الحقن وعولجت للتحليل الكيميائي النسيجي المناعي في مقاطع سهمية. ويجب أن يؤدي الحقن الناجح إلى ظهور فلورية موضعية في المنطقة المستهدفة تجسيمياً.
أولاً، في الفئران من سلالة C1q -/-، قمنا بتصوير مقاطع سهمية بسمك 30 µm من نصف الكرة المخية الأيسر (الشكل 3A) والأيمن (الشكل 3B) بعد إتمام إجراءات الكيمياء النسيجية المناعية بالكامل (الخطوات 6.1–6.17). استُخدم جسم مضاد لـ NeuN لتصوير أجسام العصبونات (اللون السماوي)، وجسم مضاد لـ C1q (اللون الأحمر) لتصوير بروتين C1q غير المسمى الذي تم حقنه قبل ساعة واحدة في البطين الأيسر. ويُلاحظ وجود C1q بوفرة في نصف الكرة المخية الأيسر في المتن العضلي المحيط بالبطينات، وتمركز مشترك عالٍ بين أجسام الخلايا العصبونية وC1q في منطقة CA3 في الحصين (الشكل 3A)، وهو ما يشبه ما نلاحظه في الفئران من النوع البري ذات التعبير الداخلي لـ C1q. وكما هو متوقع، لا يُلاحظ وجود C1q المحقون حول البطينات (أو في أي مكان في المتن العضلي) في نصف الكرة المخية المقابل بعد ساعة واحدة من الحقن (الشكل 3B). بعد ذلك، تم تصوير أدمغة فئران من النوع البري C1q +/+ (سلالة C57BL/6J) التي حُقنت داخل البطينات الدماغية (ICV) ببروتين C1q-594. وهنا، تم التأكد من إمكانية تصوير C1q-594 (اللون الأرجواني) في مقاطع سهمية بسمك 30 µm باستخدام إخماد الفلورة الذاتية فقط وتغطية العينات بصبغة DAPI (اللون الأزرق) (الخطوات 6.12–6.17). وفي نصف الكرة المخية الأيسر (المحقون)، يُلاحظ وجود C1q المحقون والمسمى فلورياً (اللون الأرجواني) في نفس التوزيع المحيط بالبطينات (الشكل 3C).
من أجل تأكيد التوضع المشترك العصبي، أُجريت تجربة ثانوية باستخدام ذكرين من الفئران من سلالة C1q -/- بعمر شهرين. في نصف الكرة المخية الواحد، تلقت الفئران حقناً داخل البطينات الدماغية (ICV) بـ 2 µL من C1q-594، وفي نصف الكرة الآخر، تلقت الفئران 2 µL من C1q-594 المثبط حرارياً (HI). أُجري التثبيط الحراري بعد الاقتران بـ 594-maleimide، حيث وُضع نصف البروتين المُحضّر في كتلة تسخين مضبوطة على 56 °C لمدة 30 min. وقد سبق أن أظهر التثبيط الحراري قدرته على تغيير البنية الأصلية لبروتين C1q وتعطيل التنشيط18. إن بروتين C1q الأصلي الطبيعي بتركيز 200 µg/mL في محلول تعليق (50 mM HEPES, 150 mM NaCl, pH 7.5) يكون قابلاً للذوبان في المحلول ولا يشكل أي تجمعات مرئية تحت مجهر الحقل المضيء (الشكل 4A). وفي المقابل، عند تسخين تحضير البروتين نفسه، لوحظت تجمعات مرئية تحت الحقل المضيء (الشكل 4B)، مما يشير إلى تغير في هيئة البروتين. بعد ذلك، تم تحديد ما إذا كان حقن HI-C1q in vivo سيغير من امتصاص العصبونات لبروتين C1q. جُمعت الأدمغة بعد ساعة واحدة من الحقن، وعولج كل نصف كرة مخية بشكل متماثل كما هو موضح في البروتوكول أعلاه. وفي مقاطع سهمية بسمك 20 µm، أُجري الكيمياء النسيجية المناعية لتحديد العصبونات. التُقطت صور بقوة تكبير 40x بإعدادات متماثلة لمنطقة CA3 في الحصين لرصد العصبونات NeuN+ (باللون السماوي) وC1q-594 (باللون الأحمر) (الشكل 5A,B). في نصف الكرة المخية المحقون بـ C1q-594 الطبيعي، لوحظ وسم قوي لـ C1q (الشكل 5A)، بينما في أنصاف الكرات المخية المحقونة بـ HI-C1q-594، لم يُلاحظ وجود C1q-594 في منطقة CA3، رغم أنه أمكن رصد البروتين الفلوري يتجمع حول حواف البطينات (الشكل 4C)، وهو ما يتفق مع حدوث تغير في الوظيفة الطبيعية لبروتين C1q فيما يتعلق بالامتصاص العصبي. وأظهر التكميم اليدوي لخلايا NeuN+ بواسطة باحث معمي في 8 حقول رؤية بتكبير 40x عدم وجود تغيرات في كثافة العصبونات في CA3 عبر أنصاف الكرات المخية (الشكل 5D)، ومع ذلك، انخفضت نسبة العصبونات التي كانت C1q+ بشكل ملحوظ في أنصاف الكرات المحقونة بـ HI-C1q-594 (الشكل 5C) وفقاً لاختبار t-test ذي الطرفين (p = 0.026, n = 2 حيوان، مع تحليل صورتين لكل نصف كرة مخية لكل حيوان).
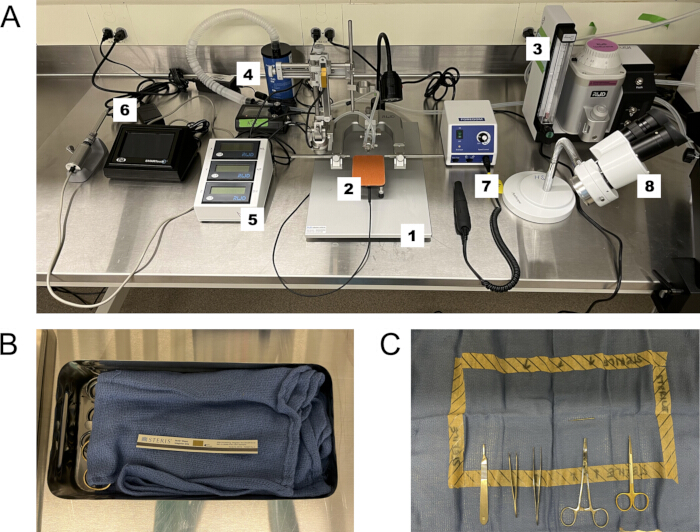
الشكل 1: تجهيز الجراحة وإعداد المجال الجراحي المعقم. (A) المعدات الجراحية: 1. جهاز التوجيه المجسم (Stereotax)، 2. جهاز تدفئة القوارض، 3. مبخر الإيزوفلوران، 4. أسطوانة تجميع أبخرة الإيزوفلوران، 5. ذراع التوجيه المجسم الرقمي، 6. حاقن دقيق، 7. مثقاب، 8. مجهر ستيريو. (B) أدوات معقمة بجهاز الأوتوكلاف ومنشفة جراحية للمجال المعقم مع شريط مؤشر بخار لتأكيد التعقيم. (C) توضع الأدوات المعقمة بالأوتوكلاف بعناية بحيث تكون "الرؤوس للداخل" في المجال المعقم المحدد على المنشفة الجراحية المعقمة. تظل المقابض خارج المركز المعقم، ويجب ألا تلامس رؤوس الأدوات الحيوان إلا بعد التعقيم باستخدام betadine و 70% ethanol. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
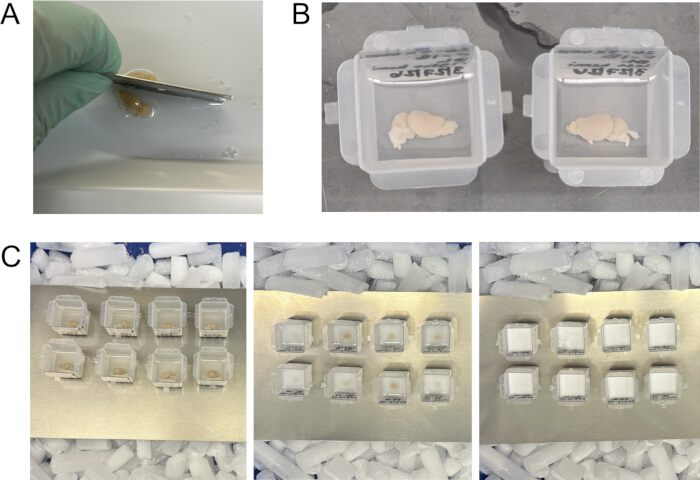
الشكل 2: معالجة الدماغ وتجميده لإجراء القطاعات السهمية. (أ) استخدم شفرة حلاقة لقطع الدماغ على طول الخط الناصف، ثم ضع كل نصف كرة دماغي بحيث يكون جانب الخط الناصف متجهًا لأسفل في قالب تجميد. (ب) املأ القوالب بمزيج بنسبة 50:50 من وسط التجميد والسكروز بتركيز 30% في PBS. (ج) جمد الأدمغة في القوالب على الثلج الجاف (يسار). ستصبح معتمة عندما تتجمد تمامًا (يمين). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
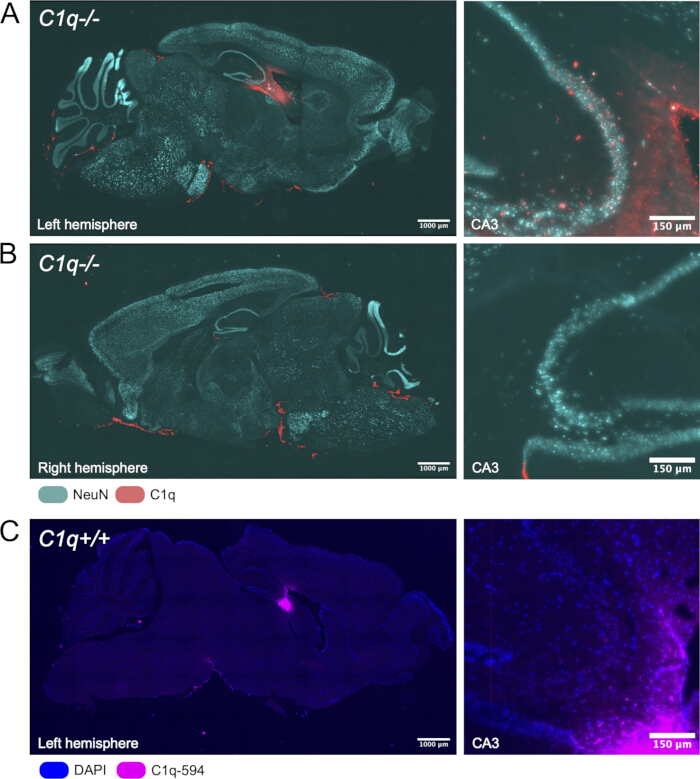
الشكل 3: نتائج ممثلة للإعطاء داخل البطينات الدماغية (ICV) لبروتين C1q بعد ساعة واحدة من الحقن. (A) مقطع سهمي لبروتين C1q المحقون (باللون الأحمر) وأجسام عصبونية NeuN+ (باللون السماوي) في نصف الكرة المخية المحقون، مع صورة مكبرة لمنطقة CA3 في الحصين المجاورة للبطين. (B) مقطع سهمي لنصف الكرة المخية المقابل لموقع الحقن في نفس الحيوان، مع بروتين C1q المحقون (باللون الأحمر) وأجسام عصبونية NeuN+ (باللون السماوي)، مع صورة مكبرة لمنطقة CA3. (C) مقطع سهمي لحيوان من النوع البري (wild-type) تم حقنه داخل البطينات الدماغية بـ C1q الموسوم فلوروسنتياً باستخدام اقتران 594-maleimide (باللون الأرجواني)، دون تضخيم بواسطة الكيمياء النسيجية المناعية، ولكن مع تغطية بشرائح زجاجية باستخدام DAPI (باللون الأزرق)، مع صورة مكبرة لمنطقة CA3. أشرطة المقياس في الصور اليسرى = 1000 µm، وأشرطة المقياس في الصور اليمنى = 150 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
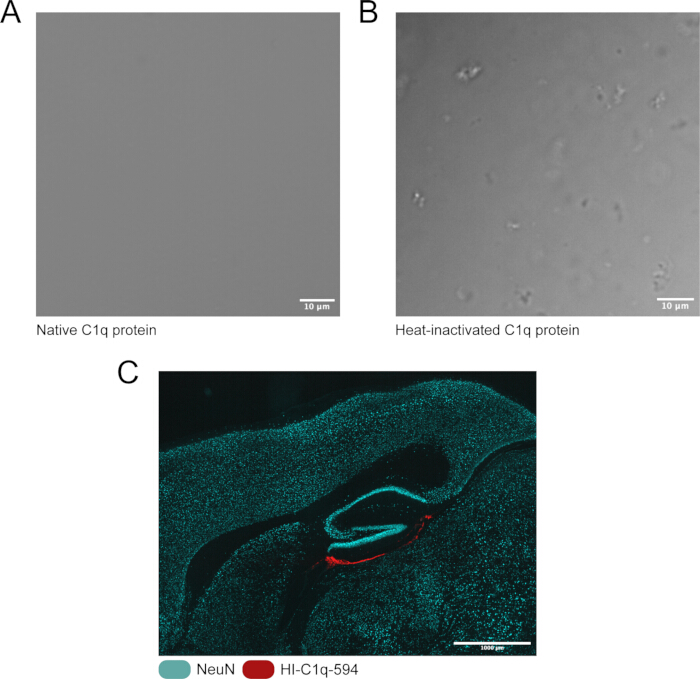
الشكل 4: التعطيل الحراري لبروتين C1q. (A) بروتين C1q الطبيعي، معلق في محلول منظم (50 mM HEPES، و150 mM NaCl، وpH 7.5) بتركيز 200 μg/mL مصور باستخدام مجهر الحقل المضيء. (B) نفس مصدر بروتين C1q، معلق في نفس المحلول المنظم وبنفس التركيز، ولكن تمت معالجته حرارياً عند 56 °C لمدة 30 min قبل التصوير بمجهر الحقل المضيء. (C) تموضع C1q-594 المعطل حرارياً (HI)- (باللون الأحمر) والخلايا NeuN+ (باللون السماوي) في مقطع سهمي بعد ساعة واحدة من الحقن داخل البطينات الدماغية (ICV). شريط المقياس العلوي = 10 µm، شريط المقياس السفلي = 1000 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
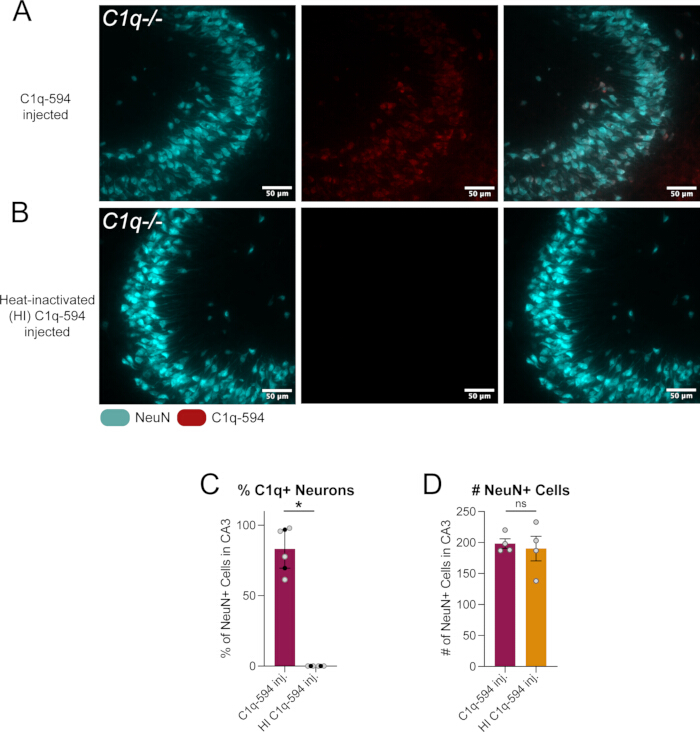
الشكل 5: التحديد الكمي لامتصاص بروتين C1q الطبيعي مقابل المعطل حرارياً في العصبونات الموجودة في الحصين. (A) مقطع سهمي لمنطقة CA3 في الحصين المجاورة للبطين، حيث حُقن C1q-594 قبل ساعة واحدة. أجسام العصبونات NeuN+ (باللون السماوي)، و C1q-594 (باللون الأحمر)، ودمج الصورتين. (B) مقطع سهمي لمنطقة CA3 في الحصين المجاورة للبطين، حيث حُقن C1q-594 المعطل حرارياً (HI) قبل ساعة واحدة. أجسام العصبونات NeuN+ (باللون السماوي)، و C1q-594 (باللون الأحمر)، ودمج الصورتين. (C) التحديد الكمي للنسبة المئوية للخلايا NeuN+ التي تكون C1q-594+ في مجال رؤية بقوة 40x، اختبار t-test ذا ذيلين. (D) التحديد الكمي لعدد الخلايا NeuN+ في مجال رؤية بقوة 40x، اختبار t-test ذا ذيلين. أشرطة المقياس = 50 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| وسم البروتين | جسم مضاد | |
| التصوير المرئي | مباشر، غير معتمد على جسم مضاد | قد يحدث تفاعل تبادلي مع بروتينات أخرى، اعتماداً على مدى توفر المستضد |
| التحضير | يتطلب البروتين المستهدف تحضيراً وتحققاً أطول وأكثر تقنية، حيث إن عملية الوسم قد تؤدي إلى تغيير بنية البروتين ووظيفته. كما قد تكون نواتج التفاعل ضعيفة وتتطلب كميات كبيرة من البروتين المستخدم. | لا يتطلب تحضيراً، حيث تتوفر العديد من الأجسام المضادة تجارياً وهي مُصادق عليها بالفعل. |
| المرونة التجريبية | إمكانية التتبع المباشر إذا رُغب في ذلك | يتطلب التثبيت |
| الحساسية | حساسية محدودة بسبب القياس المتكافئ (Stoichiometry) | يسمح بالتضخيم |
الجدول 1: مزايا وعيوب وسم البروتين مقابل الكشف باستخدام الأجسام المضادة.
المناقشة
تدعم الأدلة الناشئة وجود دور حيوي للخلايا الدبقية الصغيرة في التوازن الداخلي للجهاز العصبي المركزي، وهو دور يتوسطه مجموعة متزايدة التعقيد من العوامل المفرزة5. وتوفر القدرة على إيصال العوامل المشتقة من الخلايا الدبقية الصغيرة بطريقة زمانية ومكانية محددة أداة قيمة لفك تشابك الاتصالات العصبية المناعية المعقدة في ظل مجموعة متنوعة من الظروف البيئية والجينية.
يمكن تكييف هذه الطريقة بسهولة للإجابة على مجموعة متنوعة من الأسئلة البيولوجية. وبينما استُخدمت هذه الطريقة سابقاً لفهم أدوار C1q، وهو بروتين كبير جداً، في الوظيفة العصبية بشكل أفضل8، يمكن تطبيقها أيضاً لاستقصاء أدوار البروتينات الكبيرة الأخرى، وكذلك البروتينات الصغيرة مثل السيتوكينات والكيموكينات. وعلى الرغم من أن الأدوار المناعية للسيتوكينات والكيموكينات مفهومة جيداً إلى حد ما، إلا أن هذه العوامل تُفرز غالباً معاً، استجابةً لمؤثر إجهاد، وبطريقة واسعة النطاق in vivo. علاوة على ذلك، تزداد الأدوار غير المناعية/غير التقليدية، والتي غالباً ما تكون استتبابية، لمختلف العوامل المناعية ظهوراً ووضوحاً. ومن شأن استخدام هذه الطريقة أن يسمح باستقصاء عوامل محددة بشكل منعزل، وكذلك في مناطق محددة من الدماغ، وحتى أدوار هذه العوامل في الاستتباب. ومن التطبيقات المفيدة الأخرى لهذا البروتوكول إعطاء البروتينات المراد دراستها في سلالات الفئران المعدلة وراثياً، كما هو الحال في سلالات التعطيل الجيني (knockout) أو نماذج حالات مرضية محددة. إن القدرة على التحكم في التموضع الدقيق وكمية البروتين المراد دراسته في فأر لا يمتلك تعبيراً داخلياً لهذا البروتين يمكن استخدامها لتحديد ما إذا كان الإعطاء الموضعي والحاد للبروتين يحدث تأثيراً ما، مثل حدوث تغير سلوكي. وبدلاً من ذلك، يمكن الحقن في سلالة معدلة وراثياً تفتقر إلى مستقبل محدد أو بروتين تأشير يُفترض أنه مهم لوظيفة العامل المحقون.
بالإضافة إلى ذلك، يمكن إجراء الإعطاء داخل القحف للعوامل المشتقة من الخلايا الدبقية الصغيرة بالتزامن مع حقن عوامل أخرى لتحسين فهمنا الآلي لوظيفة بروتين ما. فعلى سبيل المثال، ومن أجل تحديد كيفية دخول C1q، وهو بروتين مشتق من الخلايا الدبقية الصغيرة، إلى العصبونات وتفاعله مع آليات الترجمة الخاصة بها، استخدمنا هذه التقنية سابقاً للإعطاء المشترك لمثبط عملية الالتقام الخلوي قبل 30 min من حقن C1q. وقد سمح لنا ذلك بتحديد أن C1q يمكنه دخول العصبونات عن طريق الالتقام الخلوي، حيث أدى التطبيق المشترك مع المثبط إلى انخفاض ملحوظ في مستويات C1q داخل العصبونات8. ويمكن إجراء تجارب مماثلة من خلال إعطاء أجسام مضادة حاجزة أو حتى عوامل ارتباط تنافسية مفترضة أخرى. كما يمكن تعديل تجارب الإعطاء المشترك هذه زمنياً عن طريق تمديد أو تقليل الفواصل الزمنية للحقن، على سبيل المثال، حقن عامل واحد قبل 30 min من الآخر، أو حقن عامل واحد قبل 5 min مقابل 1 h.
يجب مراعاة عدة عوامل عند تصميم التجارب باستخدام هذه المنهجية، بدءاً من استراتيجية الكشف عن البروتين المستهدف. وقد تم هنا توضيح نهجين نموذجيين: الوسم الفلوري المباشر للبروتين (الشكل 3C) والكشف الكيميائي النسيجي المناعي باستخدام الأجسام المضادة (الشكل 3A)، ولكل منهما مزايا وقيود محددة (الجدول 1). يتميز الكشف المعتمد على الأجسام المضادة بحساسية عالية ويسمح بتضخيم الإشارة، ولكنه يتطلب تثبيت الأنسجة، مما يجعله غير مناسب لتطبيقات مثل التصوير الحي لديناميكيات البروتين. أما الوسم الفلوري المباشر فيتجنب هذا القيد ولكنه يتطلب تعديل البروتين نفسه، وهو ما قد يؤثر على خصائصه وبالتالي يجب التحقق من صحته. وبغض النظر عن النهج المتبع، فإن التحقق الدقيق يعد أمراً أساسياً؛ فالأجسام المضادة التجارية متوفرة على نطاق واسع ولكنها قد تظهر ارتباطاً غير مستهدف أو تفاعلية متقاطعة، مما يجعل اختبار النوعية أمراً حاسماً. ويجب تأكيد أداء الأجسام المضادة كلما أمكن ذلك باستخدام ضوابط مناسبة، مثل مقارنة الصبغ في أنسجة النوع البري وأنسجة البروتين المعطل (knockout)، وهو ما يظل المعيار الذهبي للتحقق من صحة الأجسام المضادة.
في المقابل، يتطلب الوسم الفلوري المباشر تحضيراً وتحققاً قبل الاستخدام التجريبي. ورغم أن هذا النهج يتيح التصوير المباشر للبروتين دون الاعتماد على الأجسام المضادة، فمن الضروري التأكد من أن الوسم الفلوري لا يغير من بنية البروتين، أو تموضعه، أو تفاعلاته، أو وظيفته. ويعتمد التحقق المناسب على نوع البروتين، ولكن قد يشمل ذلك تأكيد الوزن الجزيئي المتوقع عن طريق لطخة ويسترن (Western blot)، أو التحقق من التموضع الخلوي أو تحت الخلوي الطبيعي، أو تقييم الحفاظ على تفاعلات البروتين-بروتين المعروفة من خلال فحوصات مثل الترسيب المناعي المشترك (co-immunoprecipitation). وفي نهاية المطاف، يمتلك كل من الكشف المعتمد على الأجسام المضادة والوسم البروتيني المباشر مزايا وقيوداً ذاتية، ويجب تحديد النهج الأكثر ملاءمة تجريبياً من خلال دراسات استطلاعية مصممة وفقاً للبروتين المستهدف والتوصيات المنشورة19.
لكي تكون هذه المنهجية موثوقة، من المهم أن يتم تحسين الإحداثيات المجسمة وتركيز البروتين المحقون اللذين يختارهما الباحث تجريبياً والتحقق من صحتهما مسبقاً. يمكن إتمام التحقق من صحة الإحداثيات من خلال الحقن التجريبي لصبغة، مثل Fast Green، ثم جمع الدماغ مباشرة بعد الحقن. سيتيح ذلك التأكيد البصري لتمركز الصبغة في المنطقة المستهدفة، بالإضافة إلى إتاحة الفرصة لتعديل الإحداثيات لضمان أدق حقن ممكن. يوصي المؤلفون بالرجوع إلى الأعمال المنشورة سابقاً لتحديد الإحداثيات المجسمة الدقيقة للمناطق المستهدفة، أو حساب الإحداثيات لاختبارها على الفئران الكبيرة أو الصغيرة بناءً على نسبة bregma-lambda، كما هو موضح في البروتوكول.
من أجل استخلاص استنتاجات تجريبية حول البروتين المحقون، هناك عدد من الضوابط الأساسية التي يجب مراعاتها وتضمينها في التجربة المصممة جيداً. توجد تحديات متأصلة في دراسة البروتينات المشتقة من الخلايا الدبقية الصغيرة عبر الإعطاء داخل الجمجمة. فإذا كان الباحث مهتماً بالاستجابة لبروتين معين في منطقة محددة من الدماغ، فإن الجراحة نفسها ستكون مسببة للالتهاب وقد تؤدي إلى تضارب النتائج. وعند النظر في البروتينات المرتبطة بالمناعة، فإن أسهل الضوابط تنفيذاً هي الضوابط الجراحية، حيث يتم إجراء جراحة وهمية (جميع الخطوات باستثناء حقن البروتين) أو إجراء حقن ضابط بالناقل (جميع الخطوات، ولكن بدلاً من حقن البروتين، يتم حقن نفس الحجم من محلول منظم البروتين فقط)، أو كليهما. وتساعد هذه الإجراءات في التمييز بين التأثيرات التي تعتمد على الجراحة أو تلف الأنسجة وبين تلك الناتجة عن البروتين نفسه. ومن الأكثر حسماً تضمين ضابط يتم فيه حقن بروتين غير نشط أو غير ذي صلة بنفس الحجم والتركيز. ومن المهم مراعاة الحجم النسبي للبروتين الضابط مقارنة بالبروتين التجريبي؛ فعلى سبيل المثال، يعد C1q بروتيناً كبيراً جداً (~450 kD)، لذا فإن حقن بروتين ضابط شائع مثل bovine serum albumin (~66 kD) قد لا يكون الخيار الأكثر ملاءمة. وبناءً على ذلك، تم استخدام C1q المثبط حرارياً كبروتين ضابط غير نشط. واعتماداً على مدى انتشار البروتين المحقون في الإطار الزمني المطلوب قبل الجمع، يمكن تنفيذ ذلك كضابط داخل الموضوع الواحد عن طريق تضمين أحد هذه الظروف الضابطة في النصف الكروي المقابل للنصف الكروي المحقون تجريبياً، كما هو موضح في النتائج التمثيلية (الشكل 4 و الشكل 5).
يُعد استراتيجية تثبيت الأنسجة اعتباراً هاماً في التصميم التجريبي، حيث يمكن لنوع التثبيت ومدته أن يؤثرا بشكل عميق على تصور البروتين، ومورفولوجيا الأنسجة، وفي بعض الحالات، وظيفة البروتين. توفر المثبتات المتقاطعة مثل paraformaldehyde (PFA) بشكل عام حفظاً فائقاً لبنية الأنسجة، ولكنها قد تقلل من اكتشاف الحواتم الحساسة للتثبيت بسبب التشابك البروتيني المفرط، وتزيد من الفلورة الذاتية، وتتطلب استعادة المستضدات. وفي المقابل، فإن المثبتات غير المتقاطعة مثل المحاليل القائمة على الكحول أو الأسيتون أو الميثانول غالباً ما تحافظ بشكل أفضل على البروتينات الحساسة للتثبيت، ولكن يمكن أن تؤثر سلباً على سلامة الأنسجة. ويمكن التخفيف من هذه المقايضات عن طريق تحسين مدة وطريقة التثبيت، بما في ذلك استخدام المقاطع المجمدة الطازجة مع التثبيت على الشريحة، أو التروية الملحية المتبوعة بغمر قصير في PFA، أو التثبيت بالتروية القياسية، اعتماداً على الأهداف التجريبية. ونظراً لعدم وجود استراتيجية تثبيت واحدة مثالية لجميع التطبيقات، يجب على الباحثين اختيار وتحسين ظروف التثبيت تجريبياً بناءً على نقاط النهاية التجريبية الأساسية لتحقيق أفضل توازن بين حفظ الأنسجة والكشف عن البروتين.
الغرض من هذا البروتوكول هو توحيد معايير توصيل البروتين بدلاً من وصف طرق لقياس النتائج التجريبية؛ ومع ذلك، قد تكون عدة مناهج مفيدة اعتماداً على أهداف الدراسة. في هذا المثال، يتم تقييم امتصاص البروتين النوعي حسب نوع الخلية عن طريق الوسم المناعي باستخدام أجسام مضادة ضد علامات خلوية (مثل NeuN للعصبونات) وقياس التوضع المشترك مع البروتين المستهدف (الشكل 5)، رغم أن سلالات الفئران ذات المراسل الفلوري توفر وسيلة بديلة لتحديد مجموعات خلوية محددة. وثمة نتيجة مهمة أخرى هي انتشار البروتين، والذي يتأثر بشدة بالخصائص الكيميائية الحيوية للبروتين المحقون. وعندما يكون التوصيف الدقيق لانتشار البروتين مطلوباً، نوصي بالحقن المشترك لمتتبع فلوري خامل، مثل الديكستران بأوزان جزيئية محددة، لتقدير توزيع الحقن والانتشار النسيجي في نقاط زمنية محددة بعد التوصيل داخل القحف. وقد قام المؤلفون سابقاً بإجراء هذه التجارب لتحديد المعايير التجريبية لقسم النتائج التمثيلية8.
أخيرًا، قد يكون من الضروري تحسين عملية الكشف عن البروتين وعملية التوصيل داخل القحف أثناء استكشاف الأخطاء وإصلاحها. أحد التحديات الشائعة هو الحصول على إشارة فلورية موثوقة من البروتين المستهدف. وكما نوقش سابقاً، تعد استراتيجية التثبيت محدداً رئيسياً لجودة الإشارة. إذا كانت الفلورة الذاتية العالية مصحوبة بإشارة فلورية حقيقية ضعيفة، فيوصى أولاً بتقليل مدة و/أو مدى تثبيت الأنسجة، حيث أن التثبيت المفرط أمر شائع ويمكن أن يسهم في زيادة الفلورة الذاتية وتقليل إشارة الهدف معاً. يتضمن هذا البروتوكول أيضاً محلولاً لإخماد الفلورة الذاتية، مما قد يحسن نسبة الإشارة إلى الضوضاء للفلورة المستهدفة. عند تنفيذ إجراء الحقن بشكل صحيح، يجب أن ينتج عن ذلك حد أدنى من تلف الأنسجة. ولا ينبغي ملاحظة حدوث تكهف أو تكون آفات في موقع دخول الحقن. وإذا حدث أي منهما، فقد يلزم تحسين تحضير الماصات المسحوبة زجاجياً لضمان اختراق الأنسجة بشكل نظيف. على سبيل المثال، تأكد من أن طرف الماصة صلب بما يكفي ولا ينثني عند ملامسة متن الدماغ، وقم بتعديل الشطب حسب الحاجة لإنتاج حافة حادة تسهل الدخول السلس. بالنسبة للحقن في مناطق الدماغ العميقة، قد يلزم أيضاً زيادة طول الماصة المسحوبة للسماح بالوصول إلى المنطقة المستهدفة دون أن يلامس الحقن سطح الدماغ. عند توصيل المادة المحقونة مباشرة في متن الدماغ بدلاً من البطين، يوصى باستخدام حجم حقن صغير (<1 µL) لتقليل الوذمة، ومنع التكهف في موقع الحقن، وتقليل التدفق العكسي للمادة المحقونة أثناء سحب الماصة. يوصى أيضاً بالحقن ببطء (<500 nL/min) والانتظار لمدة 5–10 min بعد إتمام الحقن قبل سحب الماصة للسماح للمادة المحقونة بالانتشار في الأنسجة المحيطة. إذا لوحظ تدفق السائل للخلف على طول مسار الحقن أثناء إزالة الماصة أو تم اكتشافه على طول مسار الحقن بعد المعالجة الكيميائية النسيجية المناعية، فيجب تقليل حجم الحقن و/أو معدل الحقن، وتمديد فترة الانتظار بعد الحقن.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
تم دعم هذا العمل بتمويل من المركز الوطني لتنسيق أبحاث الزهايمر (NACC; NSH)، وجمعية الزهايمر (NSH)، وجائزة Germinator من معهد ديوك لعلوم الدماغ (DIBS) (JD).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| محلول ملحي بتركيز 0.9% (درجة صيدلانية) | Cytiva | Z1376 | |
| محاقن سعة 30 مل | شركة بيكتون ديكنسون (BD) | 302832 | |
| إيثانول بتركيز 70% | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimide | Invitrogen | A10256 | |
| جهاز تبخير التخدير | بيانات العالم الحقيقي (RWD) | تايجي-آي إي (TAIJI-IE) | |
| جهاز تعقيم بالخرز | VWR | 75999-324 | |
| ألبومين المصل البقري (BSA) | Genessee Scientific | 25-529 | |
| إبرة الفراشة - Vacutainer Safety-Lok | شركة بيكتون ديكنسون (BD) | 367281 | |
| غطاءات شرائح - 50 مم رقم 1 | Avantor (VWR) | 48393-081 | |
| جهاز التثبيت المجسم الرقمي للقوارض | البيانات الواقعية (RWD) | 68803 | |
| قوالب تجميد صالحة للاستخدام مرة واحدة | علوم المجهر الإلكتروني | 70182 | 22 مم × 22 مم للمقاطع السهمية لدماغ الفأر البالغ |
| مجهر التشريح | Leica | MZ FLIII | |
| وسط التضمين - Tissue-Tek OCT | ساكورا | 4583 | |
| مرطب العين | Optixcare | OPX-4242 | |
| جهاز سحب الماصات الزجاجية | Sutter Instrument Co. | طراز P-30 | نستخدم 1.14 ملي مولار، 3.5" الحجم المناسب للمحقن الخاص بنا |
| ماصات زجاجية | World Precision Instruments | 504949 | |
| جسم مضاد ثانوي من الماعز مضاد للأرنب AF594 | Invitrogen | A-11012 | |
| جسم مضاد ثانوي من الماعز مضاد للجرذ AF488 | Invitrogen | A-11006 | |
| كريم إزالة الشعر | نير | 42016527 | |
| منصة تسخين - Rodent Warmer X1 | Stoelting | 53800M | |
| محرك دقيق دوراني عالي السرعة (مثقاب) مع لقم ثقب | Stoelting | 51449 | |
| إيزوفلوران | Dechra | إيزوسباير (Isospire) | |
| المحقن المجهري ووحدة التحكم | بروتين مصل اللبن المعزول | نانولتر 2020 | |
| شرائح المجهر | العرض الأول | 8348 | |
| زيت معدني، خفيف | فيشر ساينتيفيك إديوكيشن (Fisher Scientific Education) | S25439 | |
| أوساط التثبيت مع DAPI | Sigma-Aldrich | F6057 | |
| طلاء الأظافر | علوم المجهر الإلكتروني | 72180 | |
| بروتين المتممة C1q الطبيعي للفئران | Creative Biolabs | CTP-463 | قد تحتوي المنتجات من الشركات المصنعة الأخرى على ملوثات جزيئية تثبط ديناميكيات C1q الطبيعية في الدماغ |
| قلم تحديد Pap - قلم ImmEdge | Vector Laboratories | H-4000 | |
| بارافورمالدهيد - 16% | علوم المجهر الإلكتروني | 15710 | خفف إلى تركيز 4% |
| المحلول الملحي المخفف بالفوسفات (PBS) | Sigma-Aldrich | P3813 | |
| محلول بوفيدون-أيودين، 10% (وزن/حجم) | ريكا | 3955-16 | |
| جسم مضاد أولي من الأرنب مضاد لـ C1q | Abcam | ab182451 | |
| جسم مضاد أولي من الجرذات مضاد لـ NeuN (RBFOX3) | Biolegend | 608451 | |
| سابونين | Sigma-Aldrich | 47036 | |
| شفرات مشرط - رقم 10 | VWR | 76457-442 | |
| شرائط مؤشر البخار | Steris | 801010 | |
| مسحات Puritan القطنية المعقمة ذات الرؤوس القطنية | بيوريتان | 25-806 1WC | |
| السكروز | Sigma-Aldrich | 84097 | |
| مناشف جراحية | McKesson | 16-6006-B | |
| لاصق الأنسجة - Vetbond | 3M | 1469SB | |
| محلول ملحي منظم بالتريس | Sigma-Aldrich | T5941, S7653 | |
| TrueBlack | BIOTIUM | 23007 |
المراجع
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً