نصف هنا بروتوكولاً فعالاً من حيث التكلفة ومتاحاً من الناحية التقنية لتصوير المراحل المبكرة من تطور الديدان، وهو مكتوب خصيصاً للباحثين الجدد.
مقالة منهجية
تصوير المراحل المبكرة من نمو الديدان: دليل عملي للباحثين الجدد
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
وفقاً لسجل توزيع السلالات الصادر عن مركز وراثة Caenorhabditis (CGC) والمعروض في الاجتماع الدولي الخامس والعشرين للديدان عام 2025، يستخدم ما يقرب من 8,000 مختبر في 80 دولة هذه الحيوانات في أبحاثها. ويعد إنشاء منصة مستدامة للاستزراع والصيانة أمراً ضرورياً لتوليد بيانات مباشرة حول سلوكيات الديدان، لا سيما في المختبرات ذات الخبرة أو الموارد المحدودة. نقدم هنا، باستخدام Caenorhabditis elegans كمثال، بروتوكولاً عملياً للباحثين الجدد لإنشاء سير عمل أساسي في مناولة الديدان وتصويرها. ثم نصف إجراءات جمع عينات C. elegans الطبيعية والمضطربة في مراحل نمائية مبكرة مختارة للتصوير المجهري. وتشمل أهداف التصوير تطور الخلايا الجرثومية (الانقسام المتساوي والانقسام المنصف)، والبويضات قبل الإخصاب، وهجرة واندماج النواتين الأوليتين للبويضة والحيوان المنوي، والانقسام الكاذب، والتطور الجنيني (الانقسام المتساوي) الذي يؤدي إلى نشوء الكائن الحي. وبالرغم من أن تصوير الأجنة والكائن الحي بالكامل يعد أمراً بسيطاً، فإننا نقدم إرشادات محسنة ونصائح تقنية لتسهيل التشريح الدقيق للخط الجرثومي والجنين، والجمع السريع للعينات، والتثبيت، والتصوير بنظام الفاصل الزمني، والتحليل الأساسي للصور.
المقدمة
تعد الديدان الخيطية من أقوى الكائنات النموذجية في الأبحاث الطبية الحيوية1,2، وذلك بفضل برنامجها النمائي عالي القابلية للتكرار والتنوع الذي كشفت عنه اضطرابات الجينات3,4,5,6 والأنواع ذات الصلة7,8,9,10. ومنذ أن قدمها سيدني برينر في ستينيات القرن الماضي، برزت Caenorhabditis elegans (C. elegans) كنموذج متميز يتسم بصغر حجمه، وشفافيته الضوئية، ودورة حياته السريعة التي تستغرق ثلاثة أيام، وسلالة خلوية محددة بالكامل، وجينوم متسلسل وموثق، ومجموعات أدوات وراثية متطورة للتحكم في وظائف الجينات11,12,13,14,15,16. وتكمن أهمية هذه الاستقصاءات في القدرة على تصور الأحداث البيولوجية الديناميكية من خلال المجهر، لا سيما في الخط الجرثومي والجنين؛ وهو التسلسل النمائي من الانقسام الاختزالي والانقسام الفتيلي وصولاً إلى تكوين كائن حي كامل17. وخلال هذه العملية، تتم الانقسامات الاختزالية السريعة والانقسامات الفتيلية المتتالية، وإعادة التنظيم متعدد الخلايا، بدقة مكانية وزمانية ملحوظة17.
بالمقارنة مع الجنين، الذي يُراقب عادةً in vitro، يُعد الخط الجنسي in vivo نظاماً مثالياً لدراسة كل من الانقسام الاختزالي والانقسام الميتوزي داخل نسيج واحد، لا سيما بالنسبة للباحثين الجدد، حيث تسمح مناطق الانقسام الاختزالي والميتوزي المفصولة مكانياً بالملاحظة المتزامنة لأنماط انقسام الخلايا المتميزة هذه (الشكل 1)18. في الخط الجنسي لـ C. elegans، الذي يتنظم كـ مدمج خلوي (syncytium)، تترابط الخلايا الجنسية من خلال نواة سيتوبلازمية مشتركة، وهي المحور (rachis)18 (الشكل 1). يحدث تكاثر الخلايا الجنسية من خلال الانقسام الميتوزي في الذراع القاصية للغدة التناسلية عبر انقسامات غير مكتملة وغير متماثلة للخلايا الجنسية الأولية (PGC). وخلال المرحلة المتأخرة من اليرقة الرابعة (L4)، تنفصل الخلايا النطفية في طور الباكيتين المدمجة تدريجياً عن المحور وتدخل في الانقسام الاختزالي في الذراع الدانية للغدة التناسلية19. ويمكن تصوير ذلك مباشرة in vivo في حيوانات مثبتة/مخدرة أو in vitro في خلايا نطفية أولية تم تشريحها20,21.
تعد الظواهر البيولوجية في الخط الجرثومي والجنين غنية للغاية وذات صلة واسعة عبر مجالات بحث علمية متنوعة. فبعد النضج الاختزالي، تدخل البويضات المشتقة من الخلايا الجرثومية إلى كيس المنويات ليتم تخصيبها بواسطة الحيوانات المنوية، مما يحفز عملية تكوين الجنين22,23. وتجعل المتانة التطورية المتميزة لأجنة C. elegans منها نموذجاً ممتازاً لاستكشاف الآليات الجزيئية لقطبية الخلية، وانقسام الخلية، والدورة الخلوية، وحركة الخلايا24,25. يمكن تشريح الديدان البالغة الصغيرة لتحرير الأجنة المخصبة حديثاً، والتي يتم اختيارها بعد ذلك للتصوير بنظام الفاصل الزمني للمعالم التطورية الرئيسية، بما في ذلك على سبيل المثال لا الحصر: هجرة والتحام النواتين الأوليتين للبويضة والحيوان المنوي، والانقسام الكاذب، وانقسام الخلية غير المتماثل، والتكون المعوي، وتكون الأعضاء، وما إلى ذلك.
على الرغم من أن الوصول البصري إلى الهياكل الكاملة والجزئية في الخط الجرثومي والجنين ممكن من الناحية المبدئية دائمًا، إلا أن الحصول على صور مجهرية عالية الجودة ومناسبة للنشر يظل تحديًا كبيرًا للقادمين الجدد. غالبًا ما تدمج البروتوكولات المكتوبة "القياسية" في الأدبيات العلمية الإجراءات المعقدة في أوصاف مقتضبة وغامضة لا تعكس "الدقة" العملية المطلوبة للتقنية. وتشمل الأمثلة على ذلك الكمية الدقيقة من المخدر، والتعامل اللطيف المطلوب لتجنب إتلاف الغدة التناسلية أثناء التشريح، والاختيار الدقيق لمستوى التركيز البؤري في الفحص المجهري. ونتيجة لذلك، قد يواجه الباحثون المبتدئون بشكل روتيني شهورًا من المحاولات والخطأ المحبطة، مما يتطلب توجيهًا مستمرًا، وجلسات تدريبية، واستكشافًا مكثفًا للأخطاء قبل الوصول إلى صور مرضية باستمرار. إن هذا النقل غير الفعال للمعرفة يؤدي إلى تأخير التقدم البحثي ويؤدي إلى تباين تقني غير مرغوب فيه يمكن أن يؤثر سلبًا على تفسير البيانات عبر المختبرات المختلفة.
على سبيل المثال، في الخط الجرثومي، تجعل التعقيدات التشريحية للمناسل والانسدادات الناتجة عن الأنسجة الأخرى (مثل الأمعاء) من الصعب مراقبة مورفولوجيا الخلايا أو ديناميكيات الانقسام in vivo. علاوة على ذلك، يفرض الخط الجرثومي تحديات إضافية بسبب بنيته الأنبوبية الرقيقة وحساسيته الشديدة لضغط التثبيت. ولذلك، يفضل التصوير in vitro ليس فقط للمراقبة العامة للخط الجرثومي والجنين، بل أيضاً للمراقبة التفصيلية بدقة الخلية. فعلى سبيل المثال، يمكن للخلايا المنوية الأولية القريبة المفردة التي يتم تشريحها من المناسل أن تكمل جولتين متتاليتين من الانقسام الاختزالي لتصبح أربع طلائع منوية أحادية الصيغة الصبغية، كما أن غياب ظلال البنية النسيجية يجعل من السهل التقاط صور ذات جودة أعلى. ويمكن تعميم هذه الملاحظات على أنسجة أخرى أو على الجسم بأكمله26,27,28,29,30,31,32. ومن المزايا أن كل عملية يمكن إكمالها في غضون 1 h، مما يسهل عملية التصوير بفاصل زمني (timelapse imaging).
نقدم هنا بروتوكولاً عملياً وتفصيلياً للتصوير الزمني المتقطع عبر مراحل نمائية مختارة، بدءاً من تطور الخلايا الجرثومية وصولاً إلى التطور الجنيني، وهو لا يشمل إجراءات التصوير فحسب، بل يتضمن أيضاً الخطوات التحضيرية (مثل تشريح الديدان) لخفض الحاجز التقني أمام الباحثين الجدد في مجال تصوير الديدان33. ويسلط البروتوكول الخاص بنا الضوء على عرض مرئي في الوقت الفعلي للتصوير المجهري لكل من الخط الجرثومي والجنين—بدءاً من إجراءات التثبيت المُحسّنة التي تحافظ على الحيوية خلال عمليات التسجيل التي تستمر لعدة ساعات، وصولاً إلى تكوين معاملات المجهر التي توازن بين نسبة الإشارة إلى الضوضاء وتقليل السمية الضوئية/التبييض الضوئي، وعمليات التقاط الصور الأساسية.
البروتوكول
ملاحظة: يعد الحفاظ الناجح طويل الأمد على مجموعات C. elegans هو الأساس للعمل التجريبي اللاحق، ويتطلب ذلك إنتاجاً مستمراً لوسط نمو النيماتودا (NGM) عالي الجودة، وإكثاراً موثوقاً لمصادر الغذاء البكتيرية، وتوفير ظروف بيئية مناسبة لنمو السلالات وتكاثرها، واتباع استراتيجيات فعالة لمنع فقدان المزارع بسبب التلوث.
1. استزراع الديدان والحفاظ عليها
ملاحظة: نقدم هنا بعض النصائح فقط؛ ويمكن العثور على الإجراءات المفصلة في Wormbook34. استخدم مسحوق NGM الجاهز لتقليل خطوات الوزن والتحضير.
- تتم زراعة جميع الحيوانات على أغار NGM مزروع بالغذاء. *E. coli* سلالة OP50 عند 20 °C للنوع البري (WT) و 16 °C أو 25 °C للطفرات الحساسة للحرارة (طفرات ts).
ملاحظة: يجب على الطلاب المستجدين التحقق من درجة حرارة استنبات سلالات CGC الطافرة عند استلامها.
ملحوظة: تنمو الحيوانات من النوع البري (WT) بشكل أسرع في درجات الحرارة المرتفعة؛ بينما يمكن للطفرات الحساسة للحرارة (ts) إنتاج أجنّة عند 16 °C (درجة الحرارة المسموح بها) ولكن ليس في 25 °C (درجة الحرارة التقييدية التي تظهر عندها تأثيرات فقدان الوظيفة في جين أو بروتين معين)35,36,37,38يمكن شراء السلالات والأوساط الغذائية من CGC [https://cgc.umn.edu] أو الحصول عليها كمنح من المختبرات المجاورة. - نقل الحيوانات إلى أطباق جديدة قبل التجويع (بعدد أقل بكثير من Escherichia coli (إشريكية قولونية (E. coli) (مراقبة OP50 تحت المجهر) للحفاظ على سلامتها من أجل التجارب اللاحقة (حوالي 2-3 أيام).
- تُحفظ الحيوانات في محلول التجميد المنظم (محلول S المضاف إليه الجلسرول بتركيز نهائي 15%) في درجة حرارة -80 °C ليلة كاملة، ثم تُنقل إلى صندوق تجميد أو إلى النيتروجين السائل للتخزين طويل الأمد34.
ملاحظة: يجب وضع ملصقات على جميع الأنابيب المبردة (cryovials) باستخدام أقلام تحديد دائمة مقاومة للماء وذات أساس زيتي قبل التجميد. فالأحبار ذات الأساس المائي غير متوافقة مع التخزين في درجات حرارة فائقة الانخفاض.
2. تحضير وسادة الأجاروز
- زن 3 g من الآغاروز وانقله إلى دورق مخروطي سعة 250 mL. أضف 100 mL من محلول M9 المنظم، وامزجه جيداً، ثم سخنه في فرن ميكروويف لمدة 2–3 min حتى يذوب الآغاروز تماماً (يشار إليه فيما يلي بمحلول الآغاروز المنظم).
ملاحظة: غطِّ الفتحة المخروطية بورق قصدير لمنع تبخر المحلول المنظم وتقليل أخطاء التركيز الاسموزي. يمكن تعديل الحجم الإجمالي وفقاً لمتطلبات التجربة. - انقل محلول الآغاروز المنظم الممزوج جيداً إلى أنبوب طرد مركزي سعة 1.5 mL، والذي يمكن تخزينه في درجة حرارة الغرفة لمدة تصل إلى شهر واحد. قم بصهر الآغاروز المخزن في وحدة تسخين معدنية (heater block) مضبوطة على 90–100 °C (تجاوز هذه الخطوة في حال استخدام آغاروز مُحضّر حديثاً).
- اقطع طرف رأس ماصة سعة 200 µL لتوسيع الفتحة ومنع الانسداد الناتج عن التصلب، وضع قطرة من محلول الآغاروز المنظم المصهور على شريحة زجاجية (المقاس: 75 x 25 mm؛ السماكة: 0.9–1.10 mm؛ النوع: زجاج الصودا والجير).
- غطِّ القطرة فوراً بشريحة أخرى. ضع المزيد من محلول الآغاروز المنظم حول حواف غطاء الشرائح (المقاس: 22 x 22 mm؛ السماكة: 0.25 mm) واضغط بلطف على الآغار ليشكل دائرة رقيقة ومستديرة تحيط بكل غطاء شريحة تماماً، مع التأكد من عدم وجود فقاعات هواء محبوسة.
ملاحظة: يؤدي ذلك إلى إنشاء غرفة دقيقة محكمة الإغلاق لتثبيت الحيوان ومنع الجفاف. يمكن معالجة شرائح متعددة بالتوازي لإجراء تجارب عالية الإنتاجية. - اترك الآغار ليبرد لمدة 3 min على الأقل حتى يتصلب تماماً قبل الاستخدام.
ملاحظة: استخدم وسادة الآغاروز للتصوير بمجرد تصلبها، حتى لا يتعرض الحيوان للإجهاد. فالآغار الصلب سيمتص الماء من المركز، مما يؤدي في النهاية إلى موت الحيوان.
3. الملاحظة داخل الجسم الحي لتكوين الحيوانات المنوية في الديدان الخنثى أو الذكور (الشكل 1 و الفيديو التكميلي S1)
- قم بتجهيز وسادة أغاروز كما هو موضح أعلاه في القسم 2.
- انقل بسرعة 10-20 حيواناً مُوسوماً بـ NMY-2::GFP20 (في مرحلة L4 المتأخرة) إلى 5-10 µL من هيدروكلوريد التتراميسول بتركيز 0.5% والمخفف في محلول M9 المنظم على غطاء شريحة.
ملاحظة: لمنع حركة الحيوانات وجفافها، تجنب إضافة كمية كبيرة جداً أو قليلة جداً من المحلول المنظم. اختر الديدان التي زحفت بعيداً عن حدود المستعمرة البكتيرية أو خارجها (يمكن ملاحظة تجمع E. coli ذو منطقة ضبابية وشبه شفافة تحت المجهر) لتجنب النقل غير المقصود لبكتيريا E. coli مع الدودة، مما قد يتداخل مع عملية التصوير. - قم بالتحضين لمدة 1 دقيقة حتى يتم تخدير الحيوانات بالكامل.
- أزل الشريحة العلوية برفق، مع ترك وسادة الأغاروز على الشريحة السفلية.
- اقلب الشريحة التي تحتوي على وسادة الأغاروز. المس الوسادة برفق وأنزلها فوق الديدان الموجودة في المحلول المنظم لتجنب تكون فقاعات هوائية. ثم اقلب الشريحة بحيث يكون غطاء الشريحة للأعلى.
ملاحظة: تجنب التحريك السريع لغطاء الشريحة، لأن ذلك قد يؤدي إلى إتلاف جسم الدودة. - باستخدام رأس ماصة سعة 200 µL، ضع هلام البترولوم السائل المسخن (المسخن مسبقاً مع الأغار الصلب)، وحرك رأس الماصة بسرعة على طول حدود غطاء الشريحة، واترك هلام البترولوم ليبرد، مما يؤدي إلى تثبيت غطاء الشريحة على الشريحة.
- ضع الشريحة على منصة المجهر لتصوير تطور الخلايا الجرثومية.
- بالنسبة للصور المفردة، قم بزيادة قدرة الليزر ووقت التعريض لتحسين إشارة الفلورة (وفقاً لقوة التعبير الفلوري في السلالات المختلفة)، والتي يمكن زيادتها حسب الحاجة لتحقيق رؤية فلورية أفضل.
- بالنسبة للتصوير الزمني/المقاطع العرضية (Z-stacks)، استخدم قدرة إثارة أقل ووقت تعريض أقصر لتقليل التسمم الضوئي/تبييض الفلورة.
ملاحظة: الهدف هو الحصول على بيانات تصوير مكانية وزمنية مع أقل قدر من الآثار السلبية على نمو الدودة.
4. مراقبة انقسامات الخلايا الجرثومية الأولية In vivo (الشكل 1 و الفيديو التكميلي S1)
- قم بتجهيز وسادة أغاروز كما هو موضح أعلاه في القسم 2.
- انقل 10 حيوانات موسومة بـ NMY-2::GFP39,40 (في المرحلة من نهاية L1 إلى مرحلة البالغ اليافع) إلى 5–10 µL من هيدروكلوريد التتراميزول بتركيز 0.5% والمخفف في محلول M9 المنظم على غطاء شريحة.
- قم بالتحضين لمدة 1 min حتى يتم تثبيت الحيوانات تماماً.
- أزل الشريحة العلوية، مع ترك وسادة الأغاروز على الشريحة السفلية.
- اقلب الشريحة التي تحتوي على وسادة الأغاروز. المس بلطف الوسادة التي تحتوي على الديدان في المحلول المنظم لتجنب تكون فقاعات هوائية، ثم اقلب الشريحة بحيث يكون غطاء الشريحة للأعلى.
- قم بسد حدود غطاء الشريحة باستخدام الفازلين بواسطة رأس ماصة سعة 200 µL، كما هو موضح في الخطوة 3.6.
- انقل الشريحة إلى منصة المجهر للتصوير.
5. تشريح الخط الجرثومي لـ في المختبر ملاحظة عملية تكوين الحيوانات المنوية لدى الذكور (الشكل التكميلي S1 و الفيديو التكميلي S2)
ملاحظة: يمكن تعديل حجم المحقنة وفقاً للتفضيل الشخصي. تمتلك الذكور خطاً جرثومياً كاملاً ومفرداً يحتوي على غدة تناسلية واحدة، بينما تمتلك الخنثى غدتين تناسليتين (تنتج كلتاهما الحيوانات المنوية من نهاية مرحلة L4 إلى مرحلة البلوغ المبكرة، وتنتجان البويضات في مراحل لاحقة)41.
- تحضير طازج في المختبر محلول منظم للزراعة (وسط لايبوفيتز L-15 يحتوي على 15% من مصل بقري جنيني FBS).
ملاحظة: يجب تخزين المحلول المنظم في 4 °C في الثلاجة لمدة لا تزيد عن أسبوع. ويمكن تقسيم المصل إلى أنابيب مختلفة للحفظ طويل الأمد في درجة حرارة -20 °C. - ضع ما يقرب من 10 ديدان ذكرية من سلالة N2 أو ديدان معلمة فلوريسنتياً (NMY-2::GFP; mCherry::Histone) (في مرحلة L4 المتأخرة) في أنبوب طرد مركزي سعة 1.5 مل يحتوي على 500 µL من منظم استزراع الخلايا.
- قم بطرد الأنبوب مركزياً عند 1,000 × جـ لمدة دقيقتين. قم بإزالة الطبقة العلوية برفق 400 µL من المحلول المنظم.
- أضف 400 µL من محلول التخزين المؤقت للمزرعة (culture buffer) وتكرار الخطوتين 5.2-5.3.
- انقل ما تبقى من المحلول المنظم (الذي يحتوي على الحيوانات) إلى شريحة غطاء. أضف حجماً مناسباً من هيدروكلوريد التيترا ميزول (التركيز النهائي 0.1%) أو الليفاميزول (التركيز النهائي 0.1 ملي مولار) لتثبيت الديدان الخيطية من خلال تنشيط مستقبلات الأسيتيل كولين النيكوتينية.41 ونشاط التخدير الموضعي42قم بتدوير شريحة الغطاء بلطف حتى تتوقف الديدان عن الحركة.
ملاحظة: لتقليل التكاليف، يمكن استخدام محلول M9 المنظم في عمليات الغسيل الأولية لإزالة الحطام أو *E. coli*أضف محلول التخزين المنظم (culture buffer) فقط أثناء الغسلة النهائية أو قبل تحضير الشريحة. يمكن إغفال الخطوتين 5.2-5.3 لتسريع العملية في حالات المتطلبات الخاصة أو إذا كان المحلول المنظم نظيفاً جداً. - قم بتركيب إبرتين بقياس 28 G على محاقن، مع إمساك واحدة في كل يد. ضع غطاء الشريحة تحت المجهر التشريحي، وضع الإبر بزاوية 30-45° زاوية فوق الدودة. يتم إجراء شق بالقرب من الذراع الغدية التناسلية القريبة لتحرير النسيج الغدّي. تكرر العملية لجميع الحيوانات.
ملاحظة: سيؤدي ذلك إلى إطلاق الحطام الجسدي. يُوصى المبتدئون بمزيد من التدريب. قد تصل المدة القصوى للتشريح الكامل في المحاليل المنظمة الشالة إلى <٥ دقائق. يتم ضبط التوقيت بناءً على الأهداف التجريبية. - قم بتدوير غطاء الشريحة وجمع الحطام. اسحب الحطام الكبير بلطف باستخدام ماصة، مع ترك أقل كمية ممكنة من المحلول المنظم مع ضمان بقاء الخلايا المنوية الأولية الصغيرة على غطاء الشريحة.
ملاحظة: تجنب ترك كمية كبيرة من المحلول المنظم تحت غطاء الشريحة؛ إذ يؤدي الفائض إلى حدوث حركة أثناء عملية التثبيت. - خذ شريحة نظيفة وغطِّ غطاء الشريحة برفق بالخلايا المنوية الأولية المفصولة. أحكم إغلاق حدود غطاء الشريحة باستخدام الفازلين السائل المسخن كما في الخطوة 3.6.
ملاحظة: ضع كمية صغيرة من هلام البترول السائل على الزوايا الأربع لغطاء الشريحة قبل الإغلاق لمنع التمزق الميكانيكي للخلايا المنوية. - انقل العينة إلى المجهر للتصوير.
ملاحظة: تجنب استخدام وسادات الأجاروز. يوفر الوسط السائل خلفية أكثر شفافية، مما يمنح وضوحاً بصرياً فائقاً لتمييز الخلايا النطافية الأولية.
6. تشريح الديدان ومراقبة الإخصاب وتكون الجنين in vitro تحت المجهر الفلوري (الشكل التكميلي S2، والشكل التكميلي S3، والفيديو التكميلي S3، والفيديو التكميلي S4) والمجهر الضوئي (الشكل 2 والفيديو التكميلي S5)
ملاحظة: تم الحصول على أجنة في مراحلها المبكرة عن طريق تقاطع إبرتين بقياس 28 G بحيث تكون فتحات الشطبة في اتجاهين متعاكسين بالقرب من مستودع الحيوانات المنوية. تم إغلاق الغرفة لمنع تبخر السائل ونُقلت فوراً إلى المجهر.
- لإزالة تأثير الضغط الذي يمارسه غطاء الشريحة ووسادة الأغاروز على الأجنة، قم بعمل ثقب مركزي بقطر 10 mm في طبق بتري بقطر 35 mm باستخدام مثقاب. قم بسد الجانب السفلي بزجاج تغطية مجهري بقطر 22 mm لإنشاء غرفة قابلة لإعادة الاستخدام للمجهر البؤري المعكوس.
- أضف حوالي 30 µL من منظم M9 إلى الغرفة.
ملاحظة: هذه الكمية كافية للتصوير بنظام الفاصل الزمني لمدة 4 h في كل جولة. تسمح كمية المنظم بالتصوير المستمر بدءاً من هجرة واندماج النوى الذكرية والأنثوية وصولاً إلى تشنج عضلات الجنين قبل الفقس. - اختر الحيوانات الخنثوية. انقل حوالي 20 حيواناً بالغاً حديثاً إلى منظم M9 في غرفة التصوير.
ملاحظة: تنتج الذكور الحيوانات المنوية فقط، ولا تنتج أجنة. - استخدم إبرة حقنة لإجراء قطع عرضي في الميسم مرتين لتحرير المزيد من الأجنة في مراحلها المبكرة. استخدم ملاقط الرموش لإزالة جسم الحيوان.
ملاحظة: من الناحية العملية، يكون الملقط البلاتيني صلباً جداً لإزالة بقايا الجسم في السائل. نوصي أيضاً باستخدام ملاقط الرموش الاصطناعية (ذات النهايات المتعددة) لإزالة البقايا مثل الشوكة، حيث تعمل بشكل أفضل من ملاقط الرموش الطبيعية القياسية. - قم بتغطية طبق بتري بغطائه لمنع تبخر السائل.
7. التصوير بالفاصل الزمني تحت المجهر
- ضع الشريحة/الغرفة على المجهر (على سبيل المثال، مجهر بؤري دوار مقلوب، مجهز بعدسة شيئية 60×/1.4 NA وكاميرا EMCCD) تحت مجال التكبير الأدنى (10×)، وابحث عن الحيوانات، أو الخلايا المنوية الأولية، أو الأجنة المخصبة حديثًا في المرحلة المطلوبة.
- بالنسبة للديدان غير الفلورية، حدد المرحلة التطورية للأجنة المبكرة من خلال موقع نواة الخلية، وحالة الاندماج، ومورفولوجيا ثلم الانقسام (الشكل 2 و الفيديو التكميلي S5).
- بالنسبة للخلايا المنوية الأولية المستأصلة in vitro، ابحث عن الخلايا التي تستعد للانقسام والتي تكون منفصلة عن المحور ومنتشرة بشكل دائري في المحلول المنظم (الشكل التكميلي S1 و الفيديو التكميلي S2).
- بالنسبة للديدان الفلورية، حدد المراحل بناءً على توزيع البروتين ومورفولوجيا الخلية.
ملاحظة: تم الكشف عن الفلورة باستخدام خط إثارة 488 nm مع مرشح انبعاث 525–550 nm لبروتين GFP، وخط إثارة 561 nm مع مرشح انبعاث 607–636 nm لبروتيني RFP/mCherry.
- حدد موقع هذه الخلايا أو الأجنة وانتقل إلى تكبير أعلى (63× أو 100×).
ملاحظة: نظرًا لأن مبادئ تحضير وتصوير الخلايا والأجنة هي نفسها، فإن البرنامج التعليمي التجريبي المرئي يوضح حالة الأجنة المستأصلة باستخدام قناتي المجال المضيء والفلورة. - ابدأ تسجيل فيديو أو التقاط صور Z-stack (عادةً باستخدام فاصل ≤1 µm) باستخدام برنامج الحصول على الصور الخاص بالمجهر، بفاصل مسح يصل إلى 1 s، اعتمادًا على عدد طبقات Z ومتطلبات البحث.
ملاحظة: بالنسبة للسلالات الفلورية الحساسة للتبييض الضوئي/السمية الضوئية، قلل من قدرة الليزر وقصر وقت التعريض للحد من التبييض الضوئي/السمية الضوئية أثناء التصوير طويل الأمد. - احفظ جميع الصور بصيغة .tiff لإخراج الصور مع الاحتفاظ بمعلومات التصوير الأصلية.
8. تحليل الصور
ملاحظة: يمكن تدوير الصور الفردية بصيغة .tiff أو مجموعات التصوير الزمني، واقتصاصها، وتسميتها، وقياسها، ومعالجتها باستخدام برامج خاصة بالمجهر أو برامج تحليل عامة مثل Fiji/ImageJ [https://imagej.net/software/fiji]، وهو منصة مفتوحة المصدر لتحليل الصور البيولوجية43.
- افتح الصور المكتسبة في برنامج Fiji/ImageJ. تحقق من شدة إشارة الفلورة وتوزيع النقاط أو البنى الفلورية الفردية. اختر Image | Adjust | Brightness/Contrast و Image | Hyperstacks | Stack to Hyperstack لفصل القنوات، وطبقات Z، والنقاط الزمنية في صورة tiff واحدة. اختر Image | Color | Channels Tool لتحسين توازن الألوان لغرض العرض.
- استخدم Image | Transform | Rotate لتدوير كل صورة بحيث يكون الدود موجهًا أفقيًا مع توجيه الرأس نحو اليسار. استخدم Image | Crop لإزالة المناطق الفارغة غير الضرورية إذا لزم الأمر.
- استخدم Image | Stacks | Z Project لإنشاء إسقاط Z من إطارات ممثلة ذات إشارة كافية.
ملاحظة: لتحقيق أفضل تصور بصري، يُوصى بإسقاط الإطارات ذات التباين العالي معًا. ومع ذلك، لمقارنة الاختلافات النسبية داخل نفس الأنسجة أو العضيات المحددة عبر مجموعات مختلفة، يمكن إسقاط عدة إطارات تحتوي على معلومات كاملة معًا، حتى لو كانت الإشارة ضعيفة. - استخدم File | Save As | Tiff لحفظ الصور المسقطة من أجل التحليل اللاحق.
- بناءً على المجهر البؤري المستخدم، قم بمعايرة مقياس الصورة بحيث يتم تحويل البكسلات إلى ميكرومتر (µm). بعد المعايرة، استخدم Analyze | Tools | Scale Bar لإضافة شريط مقياس.
ملاحظة: تقتصر معالجة الصور المذكورة أعلاه على التصور البصري وإعداد الأشكال التوضيحية. عندما تكون هناك حاجة إلى المعالجة بالدفعة أو القياسات الآلية، استخدم Fiji/ImageJ أو أدوات أخرى مفتوحة المصدر، مثل CellProfiler44 ومسارات التحليل القائمة على لغة Python45.
النتائج
يتطلب تصوير C. elegans على المستوى الخلوي للتحليل المظهري تقليدياً استثماراً كبيراً في المعدات البصرية، إلا أن الإلكترونيات الاستهلاكية الحديثة وأنظمة المحولات المبتكرة تتيح الآن قدرات تصوير مرضية بتكلفة منخفضة بشكل ملحوظ. لتصوير بنية الغدد التناسلية للخناث in vivo باستخدام المجهر البؤري أو غيره من الأدوات المتاحة بسهولة، نستخدم سلالة تحمل علامتين فلورسنتيتين20، حيث يحدد NMY-2::GFP البنية العامة للغدة التناسلية التي تتخذ شكل حرف U، والمحور والمنطقة القشرية للخلايا النطافية الأولية، بينما يوضح mCherry::Histone مورفولوجيا النواة والمرحلة التطورية (الشكل 1 والفيديو التكميلي S1). تُستخدم هاتان البروتينان على نطاق واسع في دراسات مختلفة46,47,48. ولالتقاط معظم المعلومات البنيوية ثلاثية الأبعاد، قمنا بالحصول على مكدس Z (Z-stack) كاملاً بفواصل 1 µm من أسفل إلى أعلى الغدة التناسلية للدودة. وبناءً على الكتلة المتراصة للكروموسوم والتراكم الضعيف لـ NMY-2 في المنطقة الاستوائية، تكون الخلايا النطافية الأولية الأكثر قرباً في مرحلة الكاريوسوم، مما يشير إلى أن هذه الخلايا بدأت انقسامها الأول (الشكل 1 والفيديو التكميلي S1). بالإضافة إلى ذلك، تحدث الانقسامات الميتوزية للخلايا الجرثومية الأولية (PGCs) في المنطقة البعيدة من الغدة التناسلية ويمكن التقاطها أيضاً باستخدام هذا البروتوكول.
من أجل الملاحظة in vitro لعملية تكوين الحيوانات المنوية، نقوم أولاً بتحضير محلول التخفيف للزراعة. يتم تشريح الديدان، وتحرير الخلايا المنوية الجرثومية في المحلول. ومن الضروري تحديد موقع الخلايا المنوية الأولية التي تستعد لانقسامها الأول بسرعة، حيث يتم التعرف عليها من خلال مورفولوجيا النواة (بداية تكسر الغلاف النووي) أو من خلال مورفولوجيا الخلية الكاملة. وتسهل السلالات الفلورية عملية تحديد المرحلة التنموية الصحيحة. يتم التقاط الصور بفواصل زمنية قدرها 30 s لتحقيق التوازن بين السمية الضوئية/التبييض الضوئي وكفاءة الالتقاط. (الشكل التكميلي S1 والفيديو التكميلي S2).
للحصول على مزيد من المعلومات حول المراحل المبكرة من التخلق الجنيني، نقوم أولاً بتحديد موقع الأجنة المخصبة حديثاً باستخدام قناة المجال المضيء (brightfield channel)، حيث تقع النواتان الأبوية والأمومية عند طرفين متقابلين من الجنين على طول محوره الرئيسي وتتحركان باتجاه بعضهما البعض للاندماج. ولملاحظة الأجنة باستخدام الشرائح القياسية، استخدمنا سلالة تعبر عن GFP::Histone49 و mCherry::PH50 لتوسيم نواة الخلية وديناميكيات الغشاء الخلوي، على التوالي. يتم التقاط هذه الصور عند طبقات Z مختلفة لإظهار عملية انقسام الخلية الكاملة (الشكل التكميلي S2 و الفيديو التكميلي S3). يرجى ملاحظة أن القدرة على تحديد الأجنة في المرحلة الصحيحة أمر أساسي. لقد اخترنا أجنة في مراحل مبكرة واستخدمنا التسجيل المستمر لرصد التطور النمائي الكامل دون أي تدخل مادي. ويسمح هذا النهج بـ >تسجيل بنظام الفاصل الزمني (timelapse) لمدة 500 دقيقة، يشمل العملية بأكملها بدءاً من الإخصاب وصولاً إلى تشنج العضلات (الشكل 2 و الفيديو التكميلي S5). وبالإضافة إلى النوع البري، تتوفر أيضاً سلالات طافرة لإجراء دراسات تصويرية مقارنة. فعلى سبيل المثال، يعد HUM-2 نظيراً للميوسين V البشري (myosin V)، الذي يلعب أدواراً حاسمة في توزيع العضيات والحويصلات والحمض النووي الريبوزي المرسال (mRNA)، وهو مهم لفسيولوجيا الحيوان والوظيفة الخلوية.51وكمثال توضيحي، استُخدم البروتوكول أيضاً لرصد ديناميكيات الأثلام في الـ hum-2 (يرجى تقديم النص المصدر الذي ترغب في ترجمته.طفرة للمقارنة البصرية (الشكل التكميلي S3 و الفيديو التكميلي S4وأخيراً، يتم معالجة صور .tiff وقصها في برنامج ImageJ/Fiji، ثم محاذاتها في برنامج لتحرير الصور لإجراء مقارنة بصرية مباشرة.52.
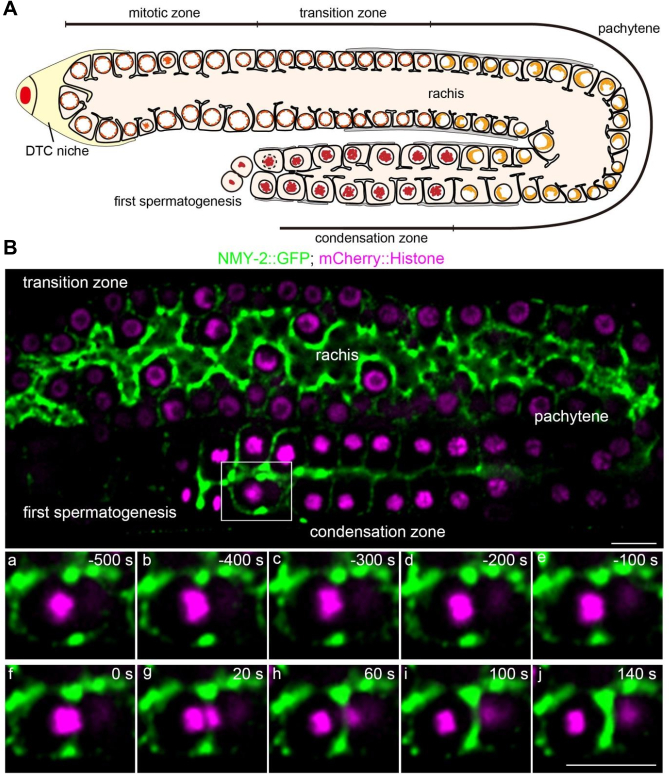
الشكل 1: مخطط وصورة فلورية لتوزيع مناطق الغدد التناسلية في الديدان في مرحلة L4 المتأخرة. (A) مخطط لبنية الغدد التناسلية في دودة في مرحلة L4 المتأخرة. DTC = خلية الطرف القاصي. (B) صورة فلورية توضح وسم NMY-2::GFP للمحور والمنطقة القشرية للخلايا المنوية القريبة، ووسم mCherry::Histone لمورفولوجيا النواة في مراحل نمائية مختلفة. شريط المقياس = 10 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
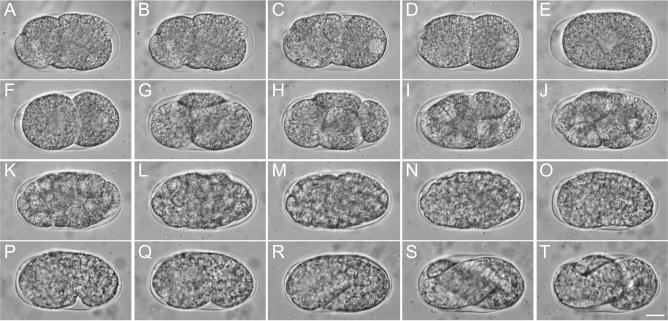
الشكل 2: التطور الجنيني لـ C. elegans. (A-E) من مرحلة الاندماج إلى مرحلة الخلية الواحدة، وتشمل هجرة واندماج النواتين الأوليتين للبويضة والحيوان المنوي، والانقسام الكاذب، وتأسيس مرحلة الخلية الواحدة. (F-J) من مرحلة الخليتين إلى المرحلة متعددة الخلايا. (K-O) مرحلة التكوين الجنيني. (P-T) من مرحلة الفاصلة إلى مرحلة تشنج العضلات. شريط المقياس = 10 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل الإضافي S1: عرض تمثيلي لتصوير عملية تكوين الحيوانات المنوية الكاملة. (أ) بداية تحلل الغلاف النووي. (ب) الطور التمهيدي المتقدم من الانقسام الاختزالي الأول. (ج) تكوين الحلقة التقلصية وبدء التضييق؛ (د) اكتمال الانقسام الاختزالي الأول؛ (هـ) بداية الانقسام الاختزالي الثاني. (و) تضييق الأخدود لخلايتين مناتويتين ثانويتين. (ز) الطور النهائي من الانقسام الاختزالي الثاني. (ح) اكتمال الانقسام الاختزالي الثاني وتكوين أربع طلائع منوية وجسم متبقٍ واحد متمركز في الوسط. شريط المقياس = 10 µm. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي S2: عرض نموذجي لتصوير المراحل المبكرة من التخلق الجنيني، مع استخدام GFP::Histone لوسم نواة الخلية وmCherry::PH لوسم غشاء الخلية. (A) الانقسام الكاذب. (B) تراجع أخدود الانقسام للعودة إلى الحالة الطبيعية. (C) الطور الاستوائي للانقسام الخلوي الأول. (D) الطور الانفصالي للانقسام الخلوي الأول. (E) مرحلة الخليتين. (F) الطور الانفصالي لانقسام الخلية AB والطور التمهيدي لانقسام الخلية P1. (G) الطور الانفصالي لانقسام الخلية P1. (H) مرحلة الأربع خلايا. شريط المقياس = 10 µm. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي S3: مقارنة نموذجية لتلم الانقسام في الأجنة المبكرة لسلالة N2 والطافرة hum-2 (ok596). تُظهر لوحة التكبير ديناميكيات التلم بمرور الوقت للمقارنة البصرية. تشير الأرقام إلى الوقت بعد بداية طور الصعود، والذي يتم تحديده من خلال انفصال الكروموسومات. شريط المقياس = 2 µm. يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي S1. تصوير زمني ممثل بالفلورسين للمناسل في المرحلة المتأخرة L4 باستخدام NMY-2::GFP و mCherry::Histone؛ 30 s لكل إطار. يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي S2. تصوير زمني ممثل بالمجال المضيء لعملية تكوين الحيوانات المنوية الكاملة في him-5 (e1490)؛ 30 s لكل إطار. يرجى النقر هنا لتحميل هذا الملف.
الفيديو التكميلي S3. تصوير زمني ممثل بالفلورة لمراحل التخلق الجنيني المبكرة باستخدام GFP::Histone وmCherry::PH؛ 30 s لكل إطار. يرجى النقر هنا لتحميل هذا الملف.
الفيديو التكميلي S4. تصوير زمني فاصل بالفلورة يمثل ثلم الانقسام في الأجنة المبكرة لسلالة N2 والطافرة hum-2 (ok596)؛ 15 ثانية لكل إطار. يرجى النقر هنا لتحميل هذا الملف.
الفيديو التكميلي S5. تصوير زمني ممثل بالمجال المضيء للتطور الجنيني لـ C. elegans سلالة N2، بدءاً من اندماج النواة الأولى للبويضة والحيوان المنوي وصولاً إلى الانقسامات الميتوزية التي تؤدي إلى تكوين الكائن الحي. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
لتحضير الديدان وتصويرها، قمنا بتبسيط مساري عمل يستندان إلى الغرف والشرائح، على التوالي. وقد استُخدم النهج القائم على الغرف لـ تصوير حي عالي الدقة، مما يتيح المراقبة طويلة المدى للعمليات التنموية مع الحد من السمية الضوئية والبهتان الضوئي53تم تكييف النهج القائم على الشرائح من تقنيات تثبيت منصات الأجاروز القياسية المستخدمة عادةً للملاحظة قصيرة المدى للنشاط العصبي والبنى تحت الخلوية.54طبقنا كلا البروتوكولين (الأقسام 3 و4 و5 و6) لإجراء ملاحظات طويلة المدى عبر عينات مختارة *C. elegans* مراحل النمو المبكرة. فيما يتعلق بـ في الجسم الحي من أجل مراقبة بنية الغدد التناسلية، أو انقسامات الخلايا الجرثومية البدائية (PGCs)، أو عملية تكوين الحيوانات المنوية، اتبعنا الإجراءات الرئيسية لطرق مُعتمدة مسبقاً، مع إدخال تعديلات معينة لضمان وصول سريع وسهل للباحثين الجدد.55بخصوص في المختبر عند ملاحظة عملية تكوين الحيوانات المنوية، فإننا نؤكد على التعرف السريع على الخلايا التي تدخل مرحلة الانتقال من الطور التمهيدي إلى الطور الاستوائي، عندما يبدأ الغلاف النووي في التحلل.56وعلى الرغم من أن وسادات الأجاروز يمكنها توفير سعة درئية وتثبيت جزئي للأجنة أو الديدان من أجل في الجسم الحي التصوير، حيث إنها تقلل التباين بين الخلايا النطفية الأولية والشريحة. لذا، لا يُوصى باستخدام وسادات الأجاروز لـ في المختبر ملاحظة الخلايا المنوية المشرحة؛ ويُفضل استخدام وسط سائل. وبالمثل، يتم التركيز على التعرف السريع على مراحل نموية محددة ذات أهمية من أجل في المختبر ملاحظة التكون الجنيني.
من خلال دمج الطرق المذكورة أعلاه، يمكن تصوير أحداث نمائية مختارة بدءاً من الخط الجرثومي وصولاً إلى الجنين. كما يمكن دمج هذه الطرق مع معدات التحكم في درجة الحرارة، مثل أنظمة التحول السريع في درجة الحرارة للتصوير الحي للخلايا، مما يجعل التجارب أكثر ملاءمة للطفرات الحساسة لدرجة الحرارة57. وبالمثل، يمكن أن يتيح التثبيت القائم على التبريد تصويراً عالي الإنتاجية وبدقة دون الميكرون لمجتمعات C. elegans مباشرة على أطباق الزرع، مما يقلل الحاجة إلى التخدير الكيميائي أو التعامل الفردي مع الديدان مع الحفاظ على الحيوية الفسيولوجية58. بالإضافة إلى ذلك، يمكن دمج الاضطرابات الاصطناعية، مثل تداخل الحمض النووي الريبوزي (RNA interference)14 والاستئصال بالليزر59,60,61,62,63,64,65، مع المجهر لفحص الاستجابات النمائية والآليات البيولوجية أو الفيزيائية الكامنة. وفي المستقبل، قد يتم تحسين سير عمل الفحص المجهري بشكل أكبر من خلال تحسين الأجهزة والبرامج والتشغيل الخاص بالمستخدم33,66. وعلى الرغم من ضرورة تعديل تفاصيل تشغيلية محددة، فإن المبادئ المختارة في هذا البروتوكول قد تكون قابلة للتطبيق على نماذج حيوانية صغيرة ومتحركة أخرى، مثل ذباب الفاكهة ويرقات سمك الزيبرا، خاصة للملاحظات in vivo التي تتطلب التثبيت والملاحظات in vitro التي تتطلب التشريح67,68.
يمكن لمجموعات بيانات الصور التي يتم الحصول عليها من خلال بروتوكولات من هذا النوع أن تدعم أيضاً التحليلات الحسابية أو الكمية اللاحقة عند استخدام أعداد كافية من العينات وإعدادات استحواذ موحدة69,70. على سبيل المثال، استُخدم تكوين الجنين في C. elegans في دراسات تتبع السلالة الخلوية71,72 وتجزئة المورفولوجيا الخلوية73,74,75، وكلاهما يعتمد على بيانات التصوير الزماني المكاني. ومن منظور ميكانيكي، يمكن لتصوير النوى، والأغشية، والبروتينات المرتبطة بالقطبية76,77,78، والبروتينات المرتبطة بالهيكل الخلوي79,80,81 أن يدعم تحليل انقسام الخلايا وتشكيل الأعضاء. ويمكن لبيولوجيا الأنظمة الكمية دمج هذه الأنواع من بيانات التصوير عبر المقاييس الجزيئية والخلوية والكائنية82,83,84,85. وفي البروتوكول الحالي، يجب النظر إلى هذه التطبيقات الأوسع كإضافات محتملة وليس كنواتج مثبتة مباشرة من خلال النتائج التمثيلية.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للإفصاح عنه.
شكر وتقدير
نعرب عن امتناننا للأستاذ Samuel H. Chung، والأستاذة Erin J. Cram، والأستاذ Javier Apfeld، والدكتور Noa William Franklin Grooms من جامعة Northeastern، والأستاذ Chuanfu Dong من جامعة Beijing Normal على دعمهم الفني. تم دعم هذا العمل مالياً من خلال مشروع الشباب التابع للمؤسسة الوطنية للعلوم الطبيعية (المنحة 22407016) ومشروع المؤسسة الوطنية للعلوم الطبيعية (المنحة 22477010) الممنوحة للدكتور Pei Zhang.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| محاقن أنسولين U-100 قياس 28 (28 Gauge) | EasyTouch | B08589MG8D | تشريح الديدان |
| أطباق بتري بقطر 35 ملم | Celltreat | 229638 | غرفة التصوير |
| أطباق بيتري مقاس 60 مم | Fisherbrand | AS4050 | استزراع الديدان |
| أجاروز | Bio-Rad | 1613100 | تحضير وسادة الأجاروز |
| C. elegans مكتبة التغذية بتداخل الحمض النووي الريبي (Ahringer) | شركة Source BioScience Ltd. | بما أنه لا يوجد نص مصدر مقدم للترجمة، يرجى تزويدي بالنص الإنجليزي المراد ترجمته وسأقوم بتحويله إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة في تعليماتك. | تجربة تداخل الحمض النووي الريبوزي (RNAi) |
| *C. elegans* السلالة: GFP::histone; mCherry::PH | مركز وراثة Caenorhabditis | YC0154 | السلالة المستخدمة في هذه الدراسة |
| C. elegans السلالة: GFP::HUM-2 | Sunybiotech | YC0381 | السلالة المستخدمة في هذه الدراسة |
| *C. elegans* سلالة: him-5 (e1490) | مركز جينات Caenorhabditis | CB4088 | السلالة المستخدمة في هذه الدراسة |
| *C. elegans* السلالة: N2، النوع البري | مركز Caenorhabditis للوراثيات | N2 (برستول) | السلالة المستخدمة في هذه الدراسة |
| *C. elegans* السلالة: NMY-2::GFP; mCherry::histone | مركز سي نورابديتيس لعلم الوراثة (Caenorhabditis Genetics Center) | YC0032 | السلالة المستخدمة في هذه الدراسة |
| *C. elegans* السلالة: PH::GFP; mCherry::histone | مركز Caenorhabditis للوراثيات | YC0029 | السلالة المستخدمة في هذه الدراسة |
| مجهر تباين التداخل التفاضلي (DIC) | Olympus | BX53 | تصوير الديدان |
| المجاهر التشريحية المجسمة | Nikon | SMZ745 | مراقبة الديدان |
| *E. coli* OP50 | مركز جينات Caenorhabditis | OP50 | مصدر الغذاء البكتيري |
| مصل جنين البقر (FBS) | بما أنك لم تزودني بالنص المصدر المراد ترجمته، يرجى إرسال المحتوى الذي ترغب في تحويله من الإنجليزية إلى العربية، وسأقوم بترجمته وفقاً للمعايير المهنية والأكاديمية المحددة في تعليماتك. | لا ينطبق | محلول منظم للاستنبات |
| محلول التجميد المنظم (المحلول المنظم S/جليسرول) | نظرًا لعدم وجود نص مصدر متاح للترجمة، يرجى تزويدي بالنص الإنجليزي المراد ترجمته من محتوى JoVE العلمي والتعليمي، وسأقوم بترجمته بدقة إلى اللغة العربية وفقًا للمعايير الأكاديمية والعلمية المحددة في تعليماتكم. | نظرًا لعدم توفر نص مصدر، يرجى تزويدي بالنص الإنجليزي المراد ترجمته ليتسنى لي تحويله إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المحددة. | التخزين طويل الأمد |
| غطاء زجاجي للتهجين | Invitrogen (Thermo Fisher Scientific) | H18200 | تحضير وسادة/غرفة الأغاروز |
| إيزوبروبيل β-D-1-ثيوجالاكتوبيرانوزيد (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | استزراع الديدان |
| وسط ليبوفيتز L-15 | غير متاح | بما أنه لم يتم توفير نص مصدري للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | محلول الاستزراع المنظم |
| هيدروكلوريد الليفاميزول | بما أنه لم يتم توفير نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية، وسأقوم بتنفيذه وفقاً للمعايير المهنية والأكاديمية المحددة. | نظرًا لعدم توفر نص مصدري للترجمة، يرجى تزويدي بالنص الإنجليزي المطلوب ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والمهنية المحددة. | تثبيت الديدان |
| محلول M9 المنظم | نظرًا لعدم توفر نص مصدر، يرجى تزويدنا بالمحتوى المراد ترجمته لنتمكن من تحويله إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المطلوبة. | لا ينطبق | استزراع الديدان وتثبيتها |
| غطاء شريحة المجهر | Fisherbrand | 12541016 | شرائح التصوير |
| حضانة رقمية صغيرة | بنشمارك ساينتيفيك (Benchmark Scientific) | BMS-H2200-HC-E | استنبات الديدان |
| مسحوق NGM المخلوط مسبقاً | لا ينطبق | لا ينطبق | استزراع الديدان |
| المجهر المقلوب Nikon Eclipse Ti2-E | Nikon | Ti2-E | تصوير الديدان |
| شرائح مجهرية سادة | Fisherbrand | 12550A3 | شرائح التصوير |
| شرائح مجهرية سادة | Corning | 2947-75X25 | تحضير وسادة الأغاروز |
| المجهر البؤري الماسح ذو القرص الدوار | Olympus | SpinSR10 | تصوير الديدان |
| وحدة المجهر البؤري ذو القرص الدوار | Yokogawa | CSU-X1 | التصوير بالفاصل الزمني |
| تتراميسول | Sigma-Aldrich | L9756 | تخدير الديدان |
| فازلين | Sangon Biotech | A510146-0500 | شرائح التصوير |
المراجع
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً