يتم وصف نهجين للزراعة المشتركة غير المتلامسة للتقييم النوعي والكمي للاستجابات المورفولوجية الفطرية أثناء التفاعلات بين الأنواع. يوضح البروتوكول كيف تؤثر العوامل الجوهرية على نمو الخيوط الفطرية، باستخدام مقايسة بين أنواع Candida كمثال. يمكن تكييف هذه الطرق بسهولة لاستقصاء التواصل بين الأنواع الميكروبية عبر كائنات متنوعة.
مقالة منهجية
اختبارات الزراعة المشتركة غير التلامسية للدراسات المورفومترية أثناء التفاعلات بين الأنواع في الفطريات
في هذه المقالة
ملخص
الملخص
عادةً ما يتأثر السلوك الخلوي والمورفولوجيا بعوامل داخلية وخارجية مختلفة في المجتمع الميكروبي. وقد تكون المقاربات المختلفة المتاحة لدراسة التواصل الميكروبي مضنية و/أو تتطلب مرافق وخبرات متخصصة. توصَف هنا مقاربتان متكاملتان للزراعة المشتركة غير المتلامسة، وهما مقايسة الزراعة المشتركة باستخدام أطباق الآبار ذات الغشاء المدرج ومقايسة تعتمد على الرائق الخالي من الخلايا (CFS)، واللتين تعتمدان على التحول المورفولوجي كاستجابة قابلة للقياس لاستقصاء دور العوامل المختلفة في تفاعل معين بين الأنواع. يسمح نظام أطباق الآبار ذات الغشاء المدرج بالتفاعل في الوقت الفعلي بين الأنواع المفصولة فيزيائياً، مع السماح في الوقت ذاته بانتشار الجزيئات خارج الخلوية. وفي المقابل، توفر المقايسة المعتمدة على CFS مقاربة مبسطة وقابلة للتوسيع لتقييم الاستجابات للأوساط المكيفة. يتضمن البروتوكول المقدم هنا إجراءات معيارية لتحضير المزارع، وتوليد الرائق المكيف، وإعداد المقايسة، والمجهرية، والحصول على الصور، والتحليل المورفومتري الكمي باستخدام Fiji، والتقييم الإحصائي. وقد تم إثبات ذلك من خلال مثال على الاستجابة المورفولوجية الفطرية للعوامل الذاتية والخارجية. توفر الطرق المقدمة هنا أدوات بديلة سهلة الوصول وقابلة للتكيف لدراسة التفاعلات الميكروبية الجديدة في مجتمع ما، ويمكن توسيعها بسهولة للبحث في الآليات التي تدعم التعايش متعدد الأنواع في مجتمع ميكروبي.
المقدمة
في الأنظمة البيئية الطبيعية والسريرية، تعيش الكائنات الدقيقة عادةً ضمن مجتمعات متعددة الميكروبات منظمة، تحكمها شبكات معقدة من التواصل داخل الأنواع وبين الأنواع 1. وتستخدم هذه التجمعات إشارات كيميائية متنوعة، بما في ذلك جزيئات استشعار النصاب، والمركبات العضوية المتطايرة، والببتيدات والبروتينات الإفرازية، لتنسيق السلوكيات على مستوى الجماعة2. ويعد رسم خرائط ديناميكيات التواصل هذه أمراً بالغ الأهمية، حيث أن التفاعلات المتخصصة التعاونية أو التنافسية أو الافتراسية تغير بشكل كبير من عملية التمثيل الغذائي الميكروبي، والبنية المكانية، والتكيف مع الإجهاد3. ومن الناحية السريرية، غالباً ما تظهر هذه الشبكات متعددة الميكروبات (مثل التجمعات البكتيرية الفطرية مزدوجة الأنواع أو التجمعات الفطرية الفطرية بين الأنواع) ضراوة تآزرية، واستعماراً متسارعاً للأنسجة، ومقاومة متزايدة لمضادات الميكروبات، مقارنةً بالمزارع الأحادية4,5. لذا، فإن فك رموز المحددات الجزيئية للتواصل الميكروبي أمر حيوي لتجاوز النماذج التقليدية وتطوير استراتيجيات مبتكرة مضادة للعدوى لتعطيل استقرار المجتمع الميكروبي6.
لتشريح الأنماط المختلفة للتواصل الميكروبي المتبادل، يستخدم الباحثون تكوينات تجريبية متنوعة، تُستخدم بشكل أساسي في بيولوجيا الخلايا الثديية، وعلم المناعة، وعلم الأورام7,8,9. فعلى سبيل المثال، تُعد نماذج الاستزراع المشترك ذات الاتصال المباشر معيارًا لاستقصاء الإشارات المجاورة (juxtacrine) والتفاعلات الفيزيائية بين الخلايا10. كما تُستخدم ترتيبات مماثلة مع بعض التعديلات لدراسة التفاعلات الفيزيائية بين الميكروبات، وفهم التثبيط المتبادل بين الميكروبات أو الاستجابة الدوائية9,11,12. ومع ذلك، يصعب تمييز الآليات الكامنة، لأن كلًا من الإشارات المعتمدة على الاتصال والإشارات القابلة للانتشار تساهم في الاستجابة الملحوظة. وبينما يمكن للمقاييس التقليدية القائمة على الاتصال أن توفر رؤى مكانية، إلا أنها مجهدة و/أو تتطلب وسم سلالات متميزة، وهو أمر قد يكون شاقًا بالنسبة للكائنات غير النموذجية. وعلى العكس من ذلك، تُستخدم مقاييس Transwell (أطباق آبار ذات أغشية مدرجة)، أغلبها في الدراسات الثديية، للتمييز بين مساهمات الإشارات المعتمدة على الاتصال والإشارات القابلة للانتشار13,14,15,16. وتعتبر هذه الطريقة مفيدة بشكل خاص عندما يكون التواصل الخلوي بوساطة جزيئات مفرزة، مما يسمح بتحليل لحظي لديناميكيات الإشارات بين المجموعات الخلوية17. علاوة على ذلك، توفر المقاييس الخالية من الاتصال ميزة الفصل الغشائي التي يمكنها أيضًا دمج التجارب مع النماذج الحسابية لتتبع الميكروبات ديناميكيًا والتي قد تغفل عنها الطرق التقليدية18. ويُستخدم هذا النهج أحيانًا لدراسة الحركية التطورية لأنواع بكتيرية مختلفة في آن واحد19.
تُعد المقايسة القائمة على السائل الطافي الخالي من الخلايا (CFS) أو القائمة على الوسط المُكَيَّف بديلاً منخفض التكلفة وعالي الإنتاجية لمقايسة لوحة الآبار ذات الغشاء المُدرج. ومن المعروف استخدام هذا النوع في الطب التجديدي وبيولوجيا الأوعية الدموية لعزل السيكريتومات المطلوبة لفهم إصلاح الأنسجة بوساطة الخلايا الجذعية و/أو تكوين الأوعية الدموية الناجم عن الأورام20. وبالمثل، في الدراسات الميكروبية، كانت أطر عمل CFS مفيدة في فك رموز التنافس متعدد الميكروبات. فعلى سبيل المثال، استُخدمت الرشاحات البكتيرية (مثل Pseudomonas aeruginosa acyl-homoserine lactones أو Lactobacillus metabolites) لتعديل نضج الغشاء الحيوي الفطري21,22. وفي الآونة الأخيرة، مكنت المنصات الموائعية الدقيقة من تحقيق محاكاة حيوية فسيولوجية عالية الدقة من خلال تقنيات العضو على شريحة23,24. ورغم أنه قد تم تنفيذ أنظمة الموائع الدقيقة للكشف المتزامن عن استجابة المجتمع الميكروبي تجاه السيكريتومات الخاصة به، إلا أنها تتطلب أجهزة وخبرات متخصصة وقد لا يكون من السهل تنفيذها في جميع البيئات25,26,27. وبالتالي، تعد مقايسات لوحة الآبار ذات الغشاء المُدرج والمقايسات القائمة على CFS الطرق المفضلة في معظم الحالات. ويعتمد الاختيار بين هاتين المقايستين على طبيعة الجزيء الإفرازي؛ فإذا كان الجزيء الإفرازي غير مستقر، أي أن عمر النصف له قصير، ويتطلب قياس النشاط في الوقت الفعلي، فإن مقايسة لوحة الآبار ذات الغشاء المُدرج تكون أكثر ملاءمة. ومن ناحية أخرى، إذا كان الجزيء الإفرازي مستقراً وكانت التجربة على نطاق واسع، فإن المقايسة القائمة على CFS تكون أكثر اقتصادية.
الهدف الأساسي من هذا البروتوكول هو تقديم منهجية تتبع نوعية وكمية خطوة بخطوة لتقييم الخصائص المورفولوجية، باستخدام طبق آبار الغشاء المدرج ومنصات CFS (الشكل 1). وقد تم إثبات ذلك هنا باستخدام التواصل المدفوع بالعوامل المفرزة بين Candida albicans وCandida glabrata كمثال. بالإضافة إلى ذلك، يمكن لهذه الأدوات قياس تأثيرات المتغيرات الجينية الجوهرية (مستوى التضاعف الكروموسومي وحالة موقع التزاوج) في تغيير التطور الهندسي المطلق (الطول والحجم والقطر) لخيوط C. albicans عند تعرضها لجزيئات الإشارات الإفرازية. يوفر هذا البروتوكول المعتمد منصة بسيطة وميسورة التكلفة وغير تلامسية، مناسبة لدراسة ديناميكيات الإشارات بين الأنواع.
البروتوكول
يُصنف كل من C. albicans و C. glabrata على أنهما مسببان للأمراض الانتهازية البشرية من المستوى الثاني للسلامة البيولوجية (BSL-2). يجب تنفيذ جميع الخطوات التجريبية داخل كبائن السلامة البيولوجية المعتمدة مع الالتزام الصارم بممارسات الميكروبيولوجيا الجيدة (GMP) وإجراءات الاحتواء المؤسسية. كما يجب ارتداء معدات الوقاية الشخصية (PPE)، بما في ذلك معاطف المختبر، والقفازات المزدوجة، ونظارات الوقاية، طوال فترة العمل. ويجب أن تخضع جميع المستهلكات الملوثة، والأدوات البلاستيكية، والمزارع السائلة لعملية تعقيم بالبخار المعتمدة (121 °C، 15 psi، لمدة 20 min) أو تطهير كيميائي باستخدام محلول هيبوكلوريت الصوديوم بتركيز 10% مُحضّر حديثاً قبل التخلص النهائي منها (يوصى بـ: دليل المعاهد الوطنية للصحة (NIH) للتخلص من النفايات لعام 2022). تم وصف جميع الكواشف القياسية، والمواد الكيميائية ذات الدرجة التحليلية، والمعدات المستخدمة في هذه المنهجية في جدول المواد. وتفاصيل خصائص السلالات الفطرية والأنماط الجينية الأساسية موضحة في الجدول 1. أما قائمة الأوساط المستخدمة في هذه الدراسة، مع مكوناتها، فهي متوفرة في الملف التكميلي 1.
1. تحضير الراشح الخالي من الخلايا (CFS)
- بدء المزرعة والحضن
- باستخدام حلقة بلاستيكية معقمة، يتم التقاط مستعمرة واحدة منعزلة من C. glabrata CBS138 نمت حديثاً على طبق أغار Glucose Minimal Medium (GMM)28. يتم تلقيح المستعمرة في أنبوب زجاجي معقم يحتوي على 10 mL من مرق Yeast Peptone Dextrose (YPD) القياسي (1% w/v مستخلص خميرة، 2% w/v ببتون، 2% w/v D-glucose)29.
- يتم تثبيت الأنبوب داخل حاضنة هزازة مدارية. تُحضن المزرعة عند درجة حرارة ثابتة تبلغ 37 °C مع تقليب مستمر بسرعة 200 rpm لمدة 18 h.
- يتم التحقق من دخول المزرعة بشكل موحد في مرحلة النمو الثابتة المتأخرة من خلال التأكد من أن الكثافة الضوئية (OD600) تقع ضمن نطاق مستقر يتراوح من 12.0 إلى 14.0. تُفحص الخلايا عبر المجهر للتأكد من أنها في شكل خميرة وخالية من التلوث. تُعد هذه النافذة التنموية ضرورية لضمان التراكم الأمثل لمكونات السيكريتوم خارج الخلوية المستقرة.
- فصل الخلايا والترشيح
- تُنقل مزرعة C. glabrata السائلة التي استمرت لمدة 18 h بطريقة معقمة إلى أنبوب طرد مركزي مخروطي من البولي بروبيلين معقم سعة 15 mL.
- تتم موازنة الأنابيب وطرد المزرعة مركزياً عند 5,000 x g لمدة 5 min بالضبط في درجة حرارة غرفة مضبوطة عند 25 °C لضغط الكتلة الحيوية في كريّة متماسكة.
- يُصب السائل الطافي الخام في حقنة بلاستيكية معقمة ونظيفة سعة 20 mL. تُوصل الحقنة بعناية بمرشح غشائي من البولي إيثر سلفون (PES) معقم بمسامية 0.22 µm ومنخفض الارتباط بالبروتين.
- يُطبق ضغط ميكانيكي ثابت لتمرير السائل عبر مرشح PES إلى أنبوب تجميع معقم سعة 15 mL، لإنتاج السائل الطافي الخالي من الخلايا (CFS) العامل. إذا تم الشعور بمقاومة أثناء الترشيح، يجب عدم تطبيق ضغط مفرط، لأن ذلك قد يؤدي إلى تمزق الغشاء. وفي هذه الحالات، يُستخدم مرشح غشائي جديد.
ملاحظة: لا تُعرض الـ CFS المحصودة حديثاً لدورات تجميد وإذابة سريعة أو لدرجات حرارة تخزين أقل من 4 °C قبل إعداد المقايسة، حيث يمكن أن يؤدي الترسيب البارد إلى زعزعة استقرار عوامل البروتين منخفضة الوفرة. - يتم الاحتفاظ بكريّة الخلايا المضغوطة المستهدفة داخل أنبوب التجميع الأولي في حال الانتقال مباشرة إلى تجربة الزراعة المشتركة في لوحة آبار الغشاء الملحقة (الخطوة 4).
2. تحضير لقاح Candida albicans لاختبارات تحفيز تكوين الخيوط الفطرية
- تحضير اللقاح والحفاظ عليه
- استرجاع سلالات C. albicans المستهدفة (راجع الجدول 1 لمعرفة الأنماط الجينية) مباشرة من مخزونات الجليسيرول الرئيسية طويلة الأمد المخزنة عند -80 °C. يتم تخطيط الخلايا على أطباق GMM الصلبة (0.67% w/v قاعدة نيتروجين الخميرة بدون أحماض أمينية، 2% w/v D-glucose، 2% w/v agar) لإنشاء مستعمرات عمل.
- بالنسبة للسلالات ثنائية الصيغة الصبغية (SC5314, RBY1132, RBY1133): يتم تلقيح مستعمرة واحدة في 5 mL من GMM السائل. تُحضن الأنبوبة لمدة 12 h عند 37 °C تحت تقليب مستمر بسرعة 200 rpm.
ملاحظة: يعد استخدام الوسط الأدنى (GMM) للتحضير الليلي للخلايا ثنائية الصيغة الصبغية أمراً بالغ الأهمية لتثبيط التفتل التلقائي الذي غالباً ما يحدث في الأوساط الغنية بالمغذيات. - بالنسبة للسلالات أحادية الصيغة الصبغية (GZY896, GZY803): يتم تلقيح مستعمرة معزولة في 5 mL من مرق YPD السائل المكمل بـ 0.1 mg/mL uridine (YPDU). تُحضن الأنبوبة لمدة 12 h عند 37 °C مع تقليب مستمر بسرعة 200 rpm.
- للحفاظ على الاستقرار المورفولوجي وضمان الاتساق، يجب تحديد عمليات المزارع الفرعية السائلة المتتالية بحد أقصى ثلاث مرات. إذا تجاوز التفتل التلقائي أو تكتل الخيوط الكاذبة نسبة 2% في مجموعة التحكم الأولية، يتم التخلص من السلالة وإحياء خلايا جديدة من مخزونات التجميد الرئيسية.
- المعايرة (Normalization)
- نقل 1 mL من المزارع السائلة الليلية إلى كوفيتات معقمة. يتم قياس الامتصاصية الدقيقة عند 600 nm (OD600) باستخدام مقياس طيف ضوئي UV-Visible مُعاير، مع استخدام مرق GMM أو YPDU طازج كعينة فارغة (blanking control).
ملاحظة: قد تتجاوز OD600 (كثافة الخلايا) للمزارع السائلة الليلية، خاصة تلك التي نمت في YPDU، نطاق حساسية مقياس الطيف الضوئي. في مثل هذه الحالات، يتم تخفيف المزارع بشكل مناسب (10-20 ضعفاً) قبل إجراء القياسات. - حساب حجم المزرعة الكثيفة المطلوبة لإنتاج معلق مستهدف معياري. يتم تخفيف الخلايا باستخدام GMM السائل المسخن مسبقاً (37 °C) في أنبوبة معقمة لإنشاء لقاح عمل بحجم 1 mL معدل ليصل إلى OD600 نهائي مطلق = 0.1.
- نقل 1 mL من المزارع السائلة الليلية إلى كوفيتات معقمة. يتم قياس الامتصاصية الدقيقة عند 600 nm (OD600) باستخدام مقياس طيف ضوئي UV-Visible مُعاير، مع استخدام مرق GMM أو YPDU طازج كعينة فارغة (blanking control).
3. اختبار تحفيز الخيوط الفطرية القائم على السوائل الخالية من الخلايا (تنسيق طبق 96 بئراً)
- إعداد المقايسة
- استخدم لوح ميكروتيتر من البوليسترين بـ 96 بئراً، قاعدتها مسطحة، ومعقمة وشفافة بصرياً.
- تكوين آبار الاختبار: وزع 45 µL من سائل ترشيح الخلايا (CFS) لـ C. glabrata المفلتر حديثاً (من الخطوة 1.2.4) مباشرة في آبار الاختبار المحددة. أضف 45 µL من مرق GMM المعقم (أو مرق YPDU في حال تقييم السلالات المستهدفة أحادية المجموعة الصبغية).
- ضوابط الوسط السلبية: أضف 90 µL من مرق GMM في آبار الضبط. بالإضافة إلى ذلك، في بئر منفصلة، اخلط 45 µL من مرق GMM المعقم مع 45 µL من مرق YPD فارغ غير ملقح لمراقبة مكونات الوسط الخلفية الأساسية.
- ضوابط التحريض الإيجابية: أضف 80 µL من مرق GMM مدمجاً مع 10 µL من مصل جنين البقر (FBS؛ بتركيز نهائي 10% v/v).
- التلقيح: وزع بالضبط 10 µL من اللقاح العامل لـ C. albicans المعاير عند OD600 = 0.1 (من الخطوة 2.2.2) في 90 µL من الوسط المناسب في جميع آبار التجربة والضبط.
- التحضين وجمع البيانات
- غطِ لوح الـ 96 بئراً بغطائه البلاستيكي المناسب لتقليل التبخر. ضع اللوح في حاضنة ثابتة مضبوطة عند 37 °C لمدة 3 h بالضبط. تجنب تحريك أو رج اللوح خلال هذه الفترة للسماح بتكون خيوط مستقرة.
- بعد التحضين، ضع اللوح متعدد الآبار بشكل عمودي على منصة مجهر ضوئي مقلوب مجهز ببصريات المجال المضيء ووحدة كاميرا رقمية CCD مدمجة.
- التقط صوراً آلية أو يدوية بشكل منهجي عبر خمسة حقول رؤية متميزة على الأقل لكل بئر.
- نفذ تكوين هذه المقايسة مع مكررات تقنية واضحة لكل حالة، عبر ثلاث مكررات بيولوجية مستقلة تماماً على الأقل يتم تحضيرها في أيام منفصلة.
4. مقايسة الزراعة المشتركة باستخدام أطباق الآبار ذات الغشاء المدرج
- إعداد الحجرة السفلية (البعيدة عن اللمعة)
- استخدم لوحة زراعة أنسجة معقمة تحتوي على 24 بئراً.
- قم بتوزيع 1.0 مل بالضبط من الكثافة الضوئية (OD) المُعايرة.600 = 0.1 C. albicans معلق الخلايا (من الخطوة 2.2.2) في الغرف السفلية غير اللمعية.
- إعداد الحجرة اللمعية (العلوية)
- استرجع الـ C. glabrata رواسب الخلايا التي تم عزلها خلال الخطوة 1.2.5. أعد تعليق الرواسب في 1 مل من مرق GMM المعقم، ثم قم بالطرد المركزي بسرعة 5000 x جـ لمدة 3 دقائق، ثم صب السائل. كرر خطوة الغسل هذه مرتين لإزالة المكونات الغذائية المتبقية أو عناصر الوسط القديمة.
- أعد تعليق الراسب النهائي المغسول في مرق GMM جديد، واضبط الكثافة الضوئية النهائية لتصل إلى قيمة تركيز عالية من الـ OD600 = 5.0.
- باستخدام ملقط معقم، التقط قطعة إدراج بئر غشائية معقمة تتميز بمسامات محفورة بالمسار (track-etched) 0.4 µm غشاء بولي كربونات ذو حجم مسامي. قم بخفض جسم الإدراج بسلاسة داخل تجويف لوحة الـ 24 بئر المشغولة، مع تثبيت حوافها العلوية في مواضع الثلم الوسطى.
- صرف كمية محددة بدقة من 750 µL من المركز C. glabrata مزرعة ذات كثافة بصرية (OD)600 = 5.0 في الغرفة العلوية للدرج التجويفي.
ملحوظة: الحفاظ على نسبة خلايا أولية تبلغ تقريبًا 1:50 (C. albicans إلى C. glabrataعبر حاجز الغشاء، مما يوفر تراكماً كافياً من ربيطات الإشارة مع منع ظهور آثار اصطناعية ناتجة عن التغذية الراجعة الموضعية.
- التحضين والتصوير
- قم بتغطية مجموعة لوحة آبار إدراج الغشاء المجمعة وحضنها سكونياً أو مع رج orbital خفيف (30 دورة في الدقيقة) عند 37 °C لمدة 3 ساعات بالضبط.
- بعد فترة الحضانة، استخدم ملقطاً معقماً لرفع واستخراج الغشاء الملحق العلوي (luminal insert) بعناية من كل بئر، ثم تخلص من هذه الأغشية في حاوية النفايات البيولوجية الخطرة.
ملاحظة: يجب إزالة غشاء الإدخال العلوي بالكامل قبل التصوير للتخلص من الظلال الانكسارية، وأنماط تشتت الضوء، والشوائب الشبكية الخلفية أثناء الفحص المجهري عالي الدقة. - ضع الطبق ذو الـ 24 بئراً على منصة المجهر المقلوب لإجراء التقييم المورفولوجي. في هذه الدراسة، استُخدم مجهر مقلوب مزود بعدسة شيئية بقوة تكبير 10x/0.30NA، أو 20x/0.50NA، أو عدسة شيئية بمسافة عمل طويلة جداً بقوة تكبير 40x/0.60NA، مع مجموعة مرشحات التباين التفاضلي (DIC).
5. المجهرية عالية الدقة وتحليل الصور الرقمية
- الالتقاط الرقمي للصور
- افحص أرضيات الآبار باستخدام عدسة شيئية ذات قوة منخفضة 10x للتحقق من التوزيع المنتظم للخلايا وتحديد أي أخطاء تتبع موضعية أو تجمعات خلوية شاذة.
- التقط ما لا يقل عن 10 مجالات رؤية منفصلة باستخدام عدسة شيئية معايرة 20x. تشكل هذه الصور مجموعة البيانات الأساسية لتتبع أعداد الخيوط القياسية وتوزيعات المجموعات الخلوية.
- لإجراء تحليل نمطي ظاهري دقيق وقياسات تفصيلية لحدود الخلايا، التقط صوراً مجهرية باستخدام تكوين عدسة شيئية 40x ذات مسافة عمل طويلة جداً. احفظ جميع ملفات الصور الخام.
- مسار التنميط الظاهري الكمي (Fiji)
- قم بتشغيل برنامج المعالجة Fiji (الإصدار 1.54p أو أحدث). افتح الصورة المجهرية المستهدفة من خلال الانتقال إلى File > Open أو سحب الملف مباشرة إلى لوحة تحكم Fiji.
- تتبع طول الخيط (L): انقر بزر الماوس الأيمن على أيقونة تحديد الخط في شريط أدوات Fiji الرئيسي واختر Segmented Line Tool من القائمة المنسدلة. ضع المؤشر عند نقطة الالتقاء الدقيقة التي يبرز منها الخيط المتحرك من حدود جدار خلية الخميرة الأم.
- انقر بزر الماوس الأيسر باستمرار للتتبع على طول المحور الطولي المركزي للخيط، مع وضع نقاط تثبيت لضبط أي منحنيات أو انحناءات، وأنهِ الخط عند طرفه القمي المطلق. انقر على Measure لتسجيل الطول بالميكرومتر (µm). اضغط على Ctrl+M (في نظام Windows) أو Cmd+M (في نظام Mac OS) لتسجيل الطول الإجمالي (L) بالميكرومتر (µm) في نافذة النتائج.
- لمنع تكرار قياسات الخيط نفسه، استخدم "أداة الفرشاة" (Brush Tool) المدمجة لتمييز كل خلية تم الانتهاء منها.
- توصيف خلية الخميرة الأم: حدد جسم خلية الخميرة الأم الملتصق والمقابل للخيط الذي تم تتبعه سابقاً. استخدم Segmented Line Tool لرسم خط مستقيم عبر أقصى محور طولي لجسم الخلية لقياس أقصى محور طولي لها (المحور الرئيسي، والمُعرف بالمتغير ‘a’) ونفذ أمر Measure.
- ارسم خطاً ثانوياً عمودياً تماماً على المحور الرئيسي عبر أوسع امتداد عرضي لجسم الخلية لقياس المحور العرضي العمودي المقابل (المحور الثانوي، والمُعرف بالمتغير ‘b’) ونفذ أمر Measure.
- احسب الحجم الإجمالي لخلية الخميرة الأم (CV، ويُعبر عنه بالميكرومتر المكعب، µm3) بتطبيق النموذج الهندسي القياسي لشبه الكروي المستطيل باستخدام المتغيرات المسجلة لـ ‘a’ و ‘b’: CV = 4/3 π ab2.
- السمك الهيكلي للخيط (d): اختر Segmented Line Tool. قم بقياس المسافة من الجدار الخارجي إلى الجدار المقابل أي رسم خط عمودي على محور الطول. خذ هذه القياسات عند ثلاث نقاط منفصلة ومتساوية المسافات على طول الخيط لمراعاة الاختلافات الهيكلية الطبيعية، مع تسجيل كل قياس عن طريق أمر Measure.
- احسب المتوسط الحسابي لنقاط البيانات الثلاث المتميزة هذه لتحديد قيمة متوسط السمك الدقيقة (d). اقسم قيمة متوسط القطر المحسوبة هذه على اثنين لتحديد نصف القطر الهيكلي المتغير (r = d/2).
- احسب الحجم الإجمالي للخيط (HV، ويُعبر عنه بـ µm3) من خلال معاملة الخيط كاسطوانة هندسية منتظمة غير متفرعة. طبق طول الخيط المتتبع (L) ونصف القطر الهيكلي المشتق (r) في نموذج الحساب التالي: HV = π r2 L.
6. التصميم الإحصائي
- التكرارات البيولوجية
- قم بتنفيذ جميع تخطيطات الاختبارات الفردية عبر ثلاث عمليات بيولوجية مستقلة على الأقل باستخدام مزارع بدائية طازجة ومعدة بشكل منفصل.
- ضمن كل عملية بيولوجية، خصص بئرين تقنيين متطابقين على الأقل لكل حالة لحساب تأثيرات حواف الآبار الموضعية أو تباينات الماصة.
- تحديد الوحدة التجريبية: لضمان الصلاحية الإحصائية وتجنب الشوائب، قم بتضمين ثلاثة تكرارات تقنية على الأقل لكل تجربة. تشكل الخلايا الفردية التي تم قياسها داخل بئر واحد عينات فرعية تقنية؛ وبالمثل، فإن ثلاثة آبار من هذا القبيل تقابل ثلاثة تكرارات تقنية. وبالمثل، يُقترح إجراء ثلاثة تكرارات بيولوجية (تجارب مستقلة) لكل عينة (N = 3).
- لكل حالة متميزة ضمن العملية البيولوجية، قم بقياس ما بين 50 و 100 خلية فردية عشوائياً عبر مجالات رؤية متعددة. لكل تكرار بيولوجي، احسب القيمة المتوسطة أو الوسيطة لهذه قياسات الخلايا. استخدم هذه القيم المتوسطة أو الوسيطة من التكرارات البيولوجية لجميع الاختبارات الإحصائية المقارنة اللاحقة.
- توصيف التوزيع واختبار الفرضيات
- أخضع مجموعات بيانات التكرارات البيولوجية لتقييم التوزيع الطبيعي باستخدام اختبارات Shapiro-Wilk أو D’Agostino-Pearson للتوزيع الطبيعي قبل تطبيق الطرق البارامترية (على سبيل المثال، مقارنة المتوسطات).
- مقارنات المجموعتين: عند مقارنة مجموعة اختبار واحدة مباشرة مقابل خلفية ضابطة واحدة (على سبيل المثال، نمو C. albicans من النوع البري في وسط نقي مقابل النمو في CFS معزول من C. glabrata)، طبق اختبار Student’s t-test غير المقترن وذي الذيلين، بشرط أن تتبع مجموعة البيانات التوزيع الطبيعي.
- إذا انحرفت البيانات بشكل ملحوظ عن التوزيع الطبيعي، انتقل إلى بديل غير بارامتري، مثل اختبار Mann-Whitney U (اختبار ويلكوكسون لمجموع الرتب)، الذي يقارن القيم الوسيطة للبيانات المرتبة ولا يعتمد على القيم المطلقة للبيانات. ومن المعروف أيضاً أن الاختبارات غير البارامترية غير منحازة تجاه القيم الشاذة.
- تقييمات المجموعات المتعددة: عند تقييم ثلاثة خطوط جينية أو تركيبات علاجية أو أكثر في وقت واحد (على سبيل المثال، تتبع الاختلافات المورفولوجية عبر سلالات MATa/a و MATα/α و MATa/α)، قم بإجراء تحليل تباين أحادي الاتجاه (ANOVA) قياسي متبوعاً باختبار Tukey البعدي للمقارنات الزوجية المتعددة. إذا تم انتهاك اختبار التوزيع الطبيعي، استبدل الإطار البارامتري باختبار Kruskal-Wallis غير البارامتري متبوعاً بتحليل Dunn البعدي للمقارنات المتعددة.
- التمثيل الرسومي وتصور البيانات: قم بإجراء جميع التحليلات الإحصائية والتمثيلات الرسومية باستخدام برامج الإحصاء والرسم البياني.
ملاحظة: يمكن استخدام برامج مكافئة لإجراء التحليلات الإحصائية وإعداد التمثيلات الرسومية. يمكن تمثيل البيانات من لوحة آبار الغشاء المدرج ومقايسات CFS باستخدام مخططات التشتت العمودية (column-scatter plots)، أو مخططات الكمان المشتتة (jitter-violin plots)، أو مخططات الصندوق المشتتة (jitter box plots)، والتي تمثل الوسيط (الخط المركزي) وفترة الثقة 95% CI (المستخدمة في هذه الدراسة)، أو الوسيط (الخط المركزي) والربيعين الأول والثالث (الخطوط العلوية والسفلية، على التوالي). - حدد حد الدلالة الإحصائية الرسمية عند مستوى ألفا p < 0.05. حافظ على تكوينات التدوين التقليدية عبر جميع أشكال البيانات والجداول الناتجة. على سبيل المثال: ns: p > 0.05؛ *: p < 0.05؛ **: p < 0.01؛ ***: p < 0.001؛ ****: p < 0.0001.
النتائج
اختبارات الزراعة المشتركة غير الملامسة لاستكشاف التفاعلات بين الأنواع
غالباً ما تتوسط جزيئات الإشارات خارج الخلوية الذائبة ومنخفضة الوفرة أحداث تواصل رئيسية أثناء التعايش الميكروبي المختلط. وقد تم تقييم هذه الديناميكيات باستخدام نظامين خلويين غير متلامسين، صُمما لتحليل أنماط التفاعل بين C. albicans و C. glabrata، مع منع التلامس الفيزيائي المباشر بين الخلايا. اعتمد التكوين الأول على نظام استزراع في أطباق آبار تحتوي على غشاء إدراج متكامل، حيث تم فصل المجموعتين فيزيائياً بواسطة غشاء بولي كربونات خامل مسامي بقطر 0.4 µm، مما سمح بالانتشار ثنائي الاتجاه دون عوائق للجزيئات المفرزة عبر الحاجز. أما النظام الثاني فقد رصد نمو خلايا خميرة C. albicans المستنبتة مباشرة في أطباق معايرة دقيقة تحتوي على طافي خالٍ من الخلايا تم حصاده من مستنبتات C. glabrata في طور الثبات (CgCFS).
باتساق مع الفحوصات السابقة30، طورت خلايا C. albicans ثنائية الصيغة الصبغية متباينة الزيجوت من النوع البري (SC5314) خيوطاً فطرية حقيقية بسهولة استجابةً إما لخلايا C. glabrata المفصولة بواسطة حاجز الغشاء المدرج أو إلى السائل الخلالي المفلتر لـ CgCFS. بينما ظلت الخلايا المحفوظة في وسط تحكم سلبي نقي (GMM أو YPD) في الغالب على شكل خميرة تبرعم وخيوط كاذبة (الشكل 2A). وأظهرت التحليلات المقارنة اتساقاً بين إعدادي الفحص؛ حيث أعطى كلا الفحصين قيماً متقاربة عبر جميع المقاييس الهيكلية، بما في ذلك طول الخيط وحجمه وسمكه (الشكل 2). واعتُبر الفرق في المعايير المورفولوجية معنوياً إذا كانت قيمة p الناتجة عن الاختبارات الإحصائية المناسبة، متبوعة باختبارات لاحقة للمقارنات المتعددة، تستوفي معيار 0.05. وأظهرت هذه الملاحظات أن خلايا C. albicans لم تظهر فرقاً معنوياً في طول الخيوط الفطرية الحقيقية التي حفزتها خلايا C. glabrata ضمن إعداد طبق الآبار ذي الغشاء المدرج (39.6 µm ± 6.81 µm) أو عند تعريضها لـ CgCFS المفلتر (37.13 µm ± 6.50 µm؛ الشكل 2B). وبالمثل، فإن أحجام هذه الخيوط المحفزة في نظام طبق الآبار ذي الغشاء المدرج (12.10 µm3± 2.59 µm3) لم تكن أيضاً مختلفة بشكل معنوي عن تلك الموجودة في الوسط الشرطي CgCFS (109.78 µm3± 34.69 µm3؛ الشكل 2C). وعلاوة على ذلك، أكدت قياسات قطر الخيط أن متوسط سمك الخيوط الفطرية ظل متسقاً بين الإعدادين، بقيم بلغت 1.89 ± 0.10 µm لتكوين طبق الآبار ذي الغشاء المدرج و 1.92 µm ± 0.23 µm لمعالجة CgCFS (الشكل 2D).
تؤدي حالات التضاعف الصبغي وتكوينات نمط التزاوج إلى تغيير الأبعاد المورفولوجية in vitro
تم إثبات أدوار مستويات التضاعف الصبغي وبنيات موقع التزاوج في توجيه التحولات ثنائية الشكل في أنظمة فطرية نموذجية مختلفة. هنا، تم تطبيق مسار التتبع التحليلي لقياس مقاييس التفتل، وتحديداً طول الخيوط الفطرية، والحجم الهيكلي، والسماكة، وحجم خلية الخميرة الأم المقابلة، عبر مجموعة من سلالات C. albicans أحادية الصيغة الصبغية (MATa أو MATα) وثنائية الصيغة الصبغية (MATa/a، أو MATα/α، أو MATa/α).
كشف التوصيف البنيوي أنه عند التعرض إما للإفرازات الخارجية (secretome) المحرضة لـ CgCFS أو لعينة المصل الضابطة الإيجابية، شكلت سلالة ألفا ثنائية الصيغة الصبغية متماثلة الزيجوت (MATα/α) خيوطاً ذات محاور أطول بشكل ملحوظ (45.56 µm ± 9.24 µm و 46.62 µm ± 9.07 µm) وحجم أكبر (125.24 µm3 ± 39.94 µm3 و 119.45 µm3 ± 37.32 µm3)، وذلك مقارنة بسلالة MATa/a ثنائية الصيغة الصبغية متماثلة الزيجوت (الشكل 3A,C). وبينما توجد العزلات السريرية القياسية من C. albicans بشكل غالب كسلالات ثنائية الصيغة الصبغية متباينة الزيجوت، فقد أظهرت السلالة المرجعية MATa/α خيوطاً أطول وأحجاماً أكبر مقارنة بسلالة MATa/a بعد التحريض (خاصة باستخدام المصل). ومع ذلك، كانت هذه القيم أقل بكثير من تلك الخاصة بسلالة MATα/α متماثلة الزيجوت (الشكل 3B,D).
وبالتزامن مع ذلك، أظهرت السلالات أحادية الصيغة الصبغية نمطاً عكسياً، حيث سجلت سلالة MATa أحادية الصيغة الصبغية زيادة ملحوظة في طول الخيوط الفطرية مقارنة بسلالة MATα أحادية الصيغة الصبغية تحت كلا حالتي التحريض (CgCFS: 2.06 µm ± 5.41 µm مقابل 17.58 µm ± 4.12 µm؛ المصل Serum: 23.71 µm ± 6.59 µm مقابل 21.00 µm ± 5.29 µm؛ الشكل 4A). ومن المثير للاهتمام أن هذه الزيادة في الطول ضمن الخلفية أحادية الصيغة الصبغية قد تُرجمت إلى زيادة في حجم الخيوط الفطرية (38.84 µm3 ± 19.58 µm3 مقابل 34.25 µm3 ± 19.62 µm3) فقط استجابةً لـ CgCFS (الشكل 4B). وتشير هذه القياسات الأولية المختبرية in vitro إلى وجود تفاعل معقد بين حالات الصيغة الصبغية وتكوينات موقع نوع التزاوج، مما يشير إلى أن موقعي MATa و MATα يساهمان على الأرجح بشكل مختلف في ديناميكيات تكوين الخيوط.
لدراسة العلاقات الإحصائية بين هذه المقاييس البنيوية عبر مجموعات البيانات المجمعة، تم إجراء تحليلات ارتباط رتب سبيرمان (ρ) والانحدار الخطي لبيرسون (R2)، والتي شملت جميع متغيرات مستوى التضاعف ونوع التزاوج المختبرة. وقد لُوحظت ارتباطات إيجابية عبر جميع الأزواج التي تم تحليلها: طول الخيوط الفطرية مقابل حجم الخيوط الفطرية، وطول الخيوط الفطرية مقابل سمك الخيوط الفطرية، وطول الخيوط الفطرية مقابل حجم الخلية الأم، وإجمالي حجم الخيوط الفطرية مقابل حجم خلية الخميرة الأم (الشكل 5، والجدول التكميلي 1 والجدول التكميلي 2).
لُوحظت أقوى علاقة بين طول الخيط الفطري والحجم المحسوب للخيط الفطري (ρ = 0.91؛ الشكل 5A). وعلى العكس من ذلك، كان أضعف ارتباط بين الحجم الابتدائي لخلية الخميرة الأم وحجم الخيط الفطري الناشئ (ρ = 0.63؛ الشكل 5C). بالإضافة إلى ذلك، لم يرتبط سمك الخيط الفطري بطول الخيط الفطري بقوة كما فعل حجم الخيط الفطري (الشكل 5A،D). ولم تظهر فروق ذات دلالة إحصائية في ارتباطات حجم الخلية الأم وطول الخيط الفطري وسمك الخيط الفطري (الشكل 5B،D). وتشير هذه التوزيعات الهندسية إلى أن الحجم الابتدائي الأكبر لخلية الخميرة الأم لا يؤدي بالضرورة إلى خيوط فطرية أطول أو حجم أكبر.
باختصار، تُظهر هذه النتائج فائدة كل من طبق الآبار ذو الغشاء المدرج والمقايسات القائمة على سائل خالٍ من الخلايا (CFS) في تصوير وقياس التباينات المورفولوجية في C. albicans دون أي تلامس فيزيائي. وتكشف البيانات الناتجة عن هذا البروتوكول عن خصائص مورفولوجية مختلفة عبر خلفيات مختلفة من التعدد الصبغي وتكوينات أنماط التزاوج. وتوفر إعدادات المقايسة هذه غير الملامسة منهجية مرنة وقابلة للتطوير يمكن تطويعها لاستقصاء ديناميكيات الإشارات بين الأنواع عبر تركيبات ميكروبية متنوعة.
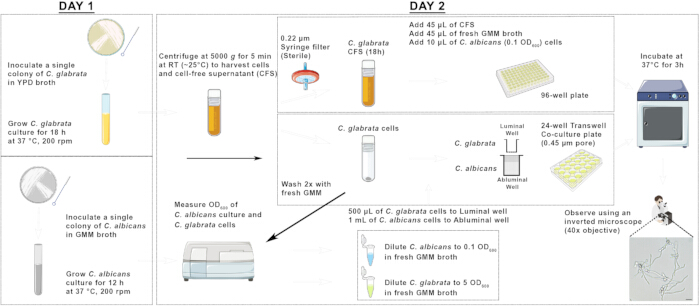
الشكل 1: تمثيل تخطيطي لطبق آبار الاستزراع المشترك باستخدام الغشاء المدرج واختبارات تحفيز الخيوط الفطرية القائمة على السائل المُرشح خالي الخلايا (CFS) مع كانديدا الأنواع يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
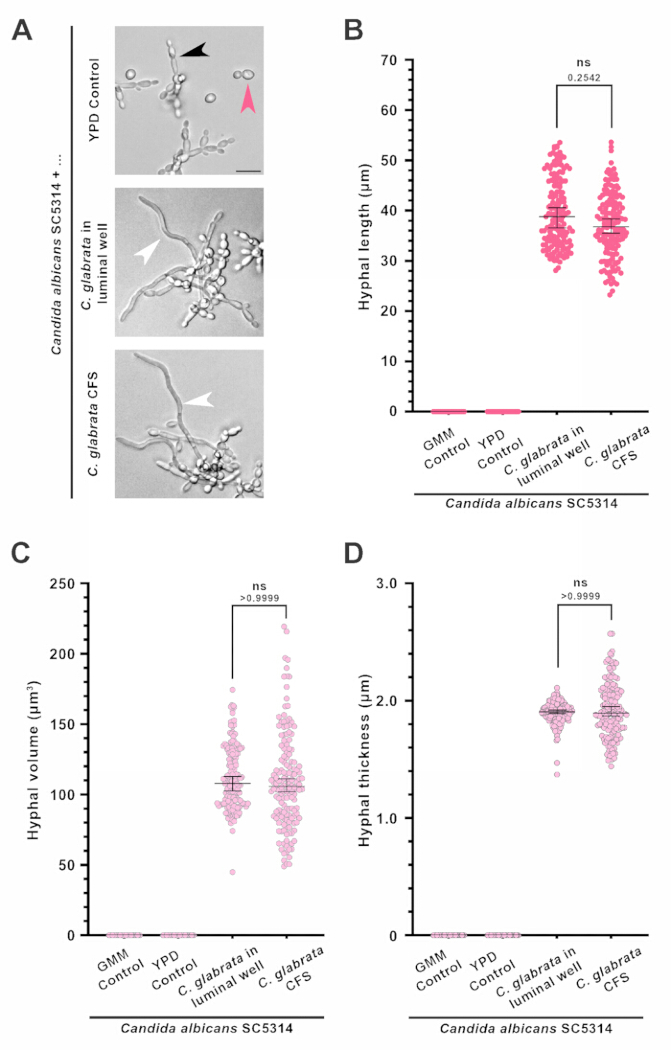
الشكل 2مقارنة لمورفولوجيا الخيوط الفطرية الملحوظة بين لوحة آبار الغشاء الغارز والمقايسات غير المتلامسة القائمة على نظام CFS. (A) صور مجهرية ممثلة بالمجال المضيء توضح الاستجابة المورفولوجية لـ *C. albicans* إلى وسط YPD (كعينة ضابطة)، *C. glabrata* في إعداد صفائح الآبار ذات الأدراج الغشائية، أو إلى الوسط المُكيَّف بواسطة الـ C. glabrata الرائق الخالي من الخلايا (CFS). تشير رؤوس الأسهم الوردية والسوداء والبيضاء إلى الخميرة، والخيوط الكاذبة، والخيوط الحقيقية، على التوالي. شريط المقياس، 10 µmأطوال الخيوط الفطرية (B)، وأحجام الخيوط الفطرية (كربون)، وسُمك الخيوط الفطرية (د) لكائن ثنائي الصيغة الصبغية متغاير الزيجوت *C. albicans* السلالة (SC5314) الملاحظة استجابةً لـ C. glabrata خلايا في ترتيب طبق آبار يحتوي على غشاء مُدرج أو *C. glabrata* CFS. تمثل البيانات الوسيط ± فترات الثقة 95%، من ثلاث تجارب بيولوجية مستقلة، حيث n = 50 خلية. ns، غير دال إحصائياً: p > 0.05. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
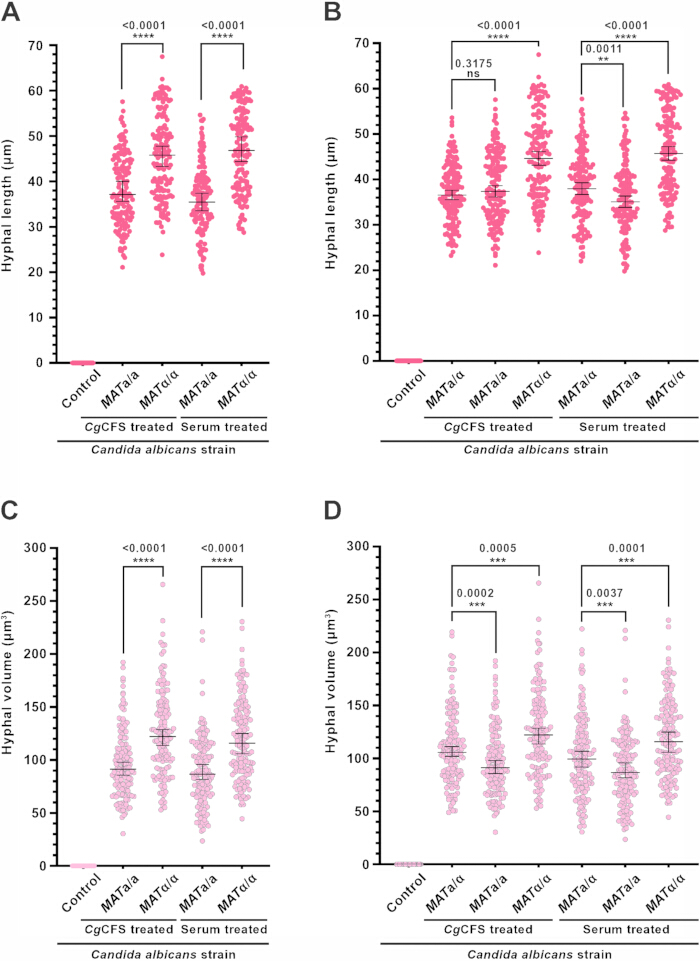
الشكل 3يؤثر نمط التزاوج والزيجوتية بشكل كبير على مورفولوجيا الخيوط الفطرية في ثنائيات الصيغة الصبغية. *C. albicans*. رسوم بيانية توضح أطوال الخيوط الفطرية المقارنة، استجابةً لجزيء الحث الموضح، بين ثنائيات الصيغة الصبغية متماثلة الزيجوت (A) وبين ثنائيات الصيغة الصبغية المتغايرة ومتماثلة الزيجوت (B) من *C. albicans*وبالمثل، تظهر أحجام الخيوط الفطرية المقارنة، استجابةً لجزيئات الحث المذكورة، بين ثنائيات الصيغة الصبغية متماثلة الزيجوت (ج) وبين ثنائي الصيغة الصبغية متماثل الزيجوت ومختلف الزيجوت (د). المجموعة الضابطة: وسط YPD، وهو الوسط الضابط الذي لا يحفز تكوين الخيوط الفطرية. تمثل البيانات الوسيط ± فواصل الثقة 95%، من ثلاث تجارب بيولوجية مستقلة، مع n = 50 خلية. الأرقام الموضحة في أعلى المخطط هي pقيم p، التي تم تحديدها من خلال مقارنات اختبار ويلكوكسون لمجموع الرتب. **: p < 0.01, ***: p < 0.001, ****: p < 0.001، دلالة إحصائية؛ ns، غير دال إحصائياً: p > 0.05. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
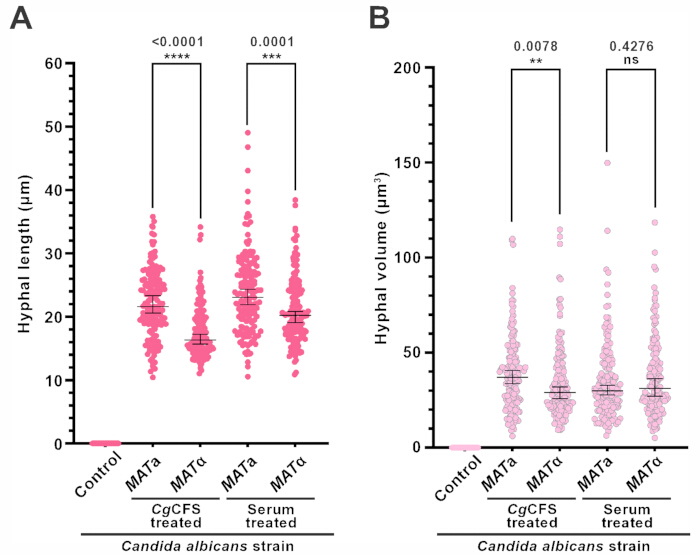
الشكل 4خصائص الخيوط الفطرية في الحالة أحادية المجموعة الكروموسومية C. albicans استجابةً لمحفزات جزيئية مختلفة. توضح الرسوم البيانية أطوال الخيوط الفطرية (A) وأحجام الخيوط الفطرية (B) في أحادية الصيغة الصبغية *C. albicans* السلالات، استجابةً للمحفز الموضح. المجموعة الضابطة: YPD، وهو الوسط الذي لا يحفز تكوين الخيوط الفطرية. تمثل البيانات الوسيط ± فواصل ثقة 95%، من ثلاث تجارب بيولوجية مستقلة، حيث n = 50 خلية. تشير الأرقام الموضحة إلى pقيم -p، التي تم تحديدها بواسطة اختبار ويلكوكسون لمجموع الرتب. \*\*: p < 0.01, ***: p < 0.001, ****: p < 0.01، ذو دلالة إحصائية؛ ns، غير دال إحصائياً: p > 0.05. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
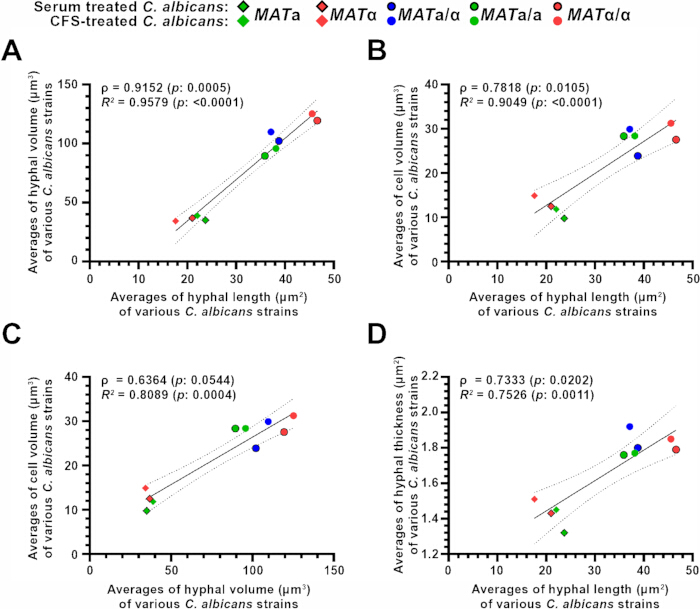
الشكل 5الارتباط بين المعلمات المورفولوجية المقابلة لمستوى التعدد الصبغي لـ *C. albicans*. توضح الرسوم البيانية ارتباط سبيرمان والانحدار الخطي بين المعلمات المورفولوجية المستخدمة في هذه الدراسة، وهي: حجم الخيوط الفطرية وطول الخيوط الفطرية (A)، وحجم الخلية وطول الخيوط الفطرية (B)، وحجم الخلية وحجم الخيوط الفطرية (كربون)، وسمك الخيوط الفطرية وطول الخيوط الفطرية (د). ρ: معامل ارتباط سبيرمان؛ R2معامل التحديد من تحليل الانحدار الخطي؛ p: pالقيمة الاحتمالية (p-value). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| سلالة | الأنواع | التعدد الصيغي | النمط الجيني | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. |
| CBS138 | كانديدا غلابراتا (*Candida glabrata*) | أحادي المجموعة الكروموسومية (1n) | اختبار تجميع الميكروبات (MAT)ألفا | ATCC 201 |
| SC5314 | كانديدا ألبيكانز (Candida albicans) | ثنائي الصيغة الصبغية (2n) | متغايرة الزيجوت (MATأ/α) | ATCC MYA-2876 |
| RBY132 | كانديدا ألبيكانس (Candida albicans) | ثنائي الصيغة الصبغية (2n) | متماثل الزيجوت (MATأ/أ); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | شايفر، د.، كوت، ب.، وايتاواي، م.، بينيت، ر. ج. نشاط الحاجز في فطريات Candida albicans يتوسط تحلل الفيرومونات ويعز التزاوج. Eukaryotic Cell. 6 (6)، 907-918، doi: 10.128/ec.090-07 (207). |
| RBY13 | Candida albicans | ثنائي الصيغة الصبغية (2n) | متماثل الزيجوت (MATألفا/ألفا); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | كانديدا ألبيكانز (Candida albicans) | أحادي المجموعة الكروموسومية (1n) | متماثل الزيجوت (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | هيكمان، م. أ. وآخرون. فطر Candida albicans "ثنائي الصيغة الصبغية الإلزامي" يشكل خلايا أحادية الصيغة الصبغية قادرة على التزاوج. Nature. 494 (7435)، 5-59، doi: 10.1038/nature1865 (2013). |
| GZY803 | Candida albicans | أحادي الصيغة الصبغية (1n) | متماثل الزيجوت (MATألفا); his4 ura3Δ::HIS4 |
الجدول 1: سلالات Candida albicans و Candida glabrata المستخدمة في هذه الدراسة. يوضح الجدول المسميات، والأنماط الجينية المحددة، وحالات التضاعف الصبغي، وزيجوتية نوع التزاوج للسلالات الفطرية التي تم تقييمها في مزارع مشتركة باستخدام أطباق آبار ذات إدراج غشائي غير متلامس والاختبارات القائمة على الرائق الخالي من الخلايا (CFS).
الجدول التكميلي 1: بيانات التحليلات الإحصائية التي أجريت على مختلف المعايير المورفولوجية لـ C. albicans. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 2: القيم الخام لجميع المكررات البيولوجية لمختلف المعلمات المورفولوجية لفطر C. albicans التي تم تقييمها في هذه الدراسة.يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 1: قائمة بالأوساط المستخدمة في هذه الدراسة مع تركيباتها.يرجى النقر هنا لتحميل هذا الملف.
المناقشة
أظهر تقرير سابق، باستخدام لوحة آبار ذات غشاء إدراج ومقايسة تعتمد على السائل الخالي من الخلايا (CFS)، أن C. albicans تطور خيوطاً فطرية استجابةً لخلايا C. glabrata أو السائل الخالي من الخلايا الخاص بها. ومع ذلك، لم يتم تحفيز هذه الاستجابة بواسطة الخمائر الأخرى، مثل Saccharomyces cerevisiae و Candida dubliniensis30. علاوة على ذلك، لم تقتصر هذه الاستجابة الخيطية على السلالة المرجعية المختبرية C. albicans SC5314 وحدها، بل حدثت أيضاً في خلفيات جينومية أخرى، بما في ذلك العزلة السريرية WUM5A30. في هذا البروتوكول، تم بناء سير عمل معياري بناءً على هذه النتائج لقياس ثلاثة مقاييس مورفولوجية: طول الخيوط الفطرية، وحجم الخيوط الفطرية، وسماكة الخيوط الفطرية. علاوة على ذلك، استُخدمت هذه العوامل المورفولوجية لتقييم كيفية تأثير الاختلافات في مستوى التعدد الصبغي وحالة موضع نوع التزاوج على الخصائص المورفولوجية لـ C. albicans استجابةً لجزيء محفز مفرز.
توفر المنهجيات غير المتصلة الموصوفة هنا إطاراً تجريبياً بسيطاً لتصور وتحليل النتائج المورفومترية لإشارات التواصل القابلة للذوبان والعابرة للأنواع. وبينما تسمح ألواح الآبار ذات الإدخالات الغشائية بالانتشار ثنائي الاتجاه بين المزارع النشطة، يوفر الفحص القائم على السائل الخالي من الخلايا (CFS) تنسيقاً قابلاً للتوسع لأن المكونات الحثية المطلوبة يتم حصادها بشكل مستقل عن المزرعة المستهدفة في المراحل اللاحقة. يتطلب الحفاظ على نسبة تقريبية تبلغ 1:50 (C. albicans إلى C. glabrata) في إعداد ألواح الآبار ذات الإدخالات الغشائية ضمان اتساق الفحص. يضمن تدرج التركيز هذا تدفقاً كافياً للجزيئات الحثية القابلة للذوبان عبر الحاجز الغشائي، مع البقاء دون عتبات تراكم مثبطات استشعار النصاب الداخلية، مثل الفارانسول، والتي يمكن أن تثبط حركية تكوين الخيوط في C. albicans31,32. وبالمثل، تتمثل الخطوة الحرجة في الفحص القائم على CFS في فترة تحضين مدتها 18 ساعة، وهي ضرورية لكي تصل مزرعة C. glabrata المصدر بشكل موحد إلى مرحلة النمو الثابتة المتأخرة. إذا كانت فترة تحضين مزرعة C. glabrata أقل من 12 ساعة أو أكثر من 24 ساعة، فمن المرجح ألا يحتوي الـ CFS المحصود على التركيز الأمثل للجزيء الحثي المحدد المدروس هنا، مما يؤدي إلى تحفيز غير مثالي للخيوط hyphal induction. يجب توحيد مرحلة النمو المناسبة لحصاد الـ CFS أو نسبة المزارع لأي هدف تجريبي جديد و/أو تركيبات جديدة من الأنواع الميكروبية.
لتحقيق أقصى قدر من إمكانية تكرار المقايسة عبر مختلف البيئات المختبرية، يوصى بإجراء التحسينات الإجرائية الرئيسية التالية. يوصى باستخدام الوسط الغذائي الأدنى للجلوكوز (GMM) للزراعة الليلية لجميع خطوط C. albicans ثنائية الصيغة الصبغية. إذ يعمل استخدام GMM على تثبيط التخيط التلقائي الخلفي الذي يلاحظ تكراراً في وسط YPD الغني بالعناصر الغذائية. وقد لوحظ هذا التخيط التلقائي أيضاً في دراسات أخرى، على الرغم من أن الآلية الكامنة وراء ذلك لا تزال غير واضحة33. كما يوصى بالإزالة الفيزيائية الكاملة لدرج غشاء البولي كربونات قبل الحصول على الصور للقضاء على تشتت الضوء والزيغ البصري الذي يمكن أن يحدث تداخلاً أثناء الفحص بالمجهر الضوئي ذي المجال الساطع وبقوة تكبير عالية.
بينما تساعد هذه التكوينات الخالية من التلامس في فصل أدوار مكونات الإشارات القابلة للذوبان، فإنها تنطوي على تحديات تجريبية محددة. فعلى سبيل المثال، تكون المقاييس الخالية من التلامس عرضة لمخاطر طفيفة مثل تمزق الغشاء بسبب المناولة غير الصحيحة، وبالتالي حدوث تداخل ميكروبي. لذا، يجب توخي الحذر عند وضع رؤوس الماصات، مع التأكد من ملامسة الرؤوس لجدران حجرة الغرسات وليس للغشاء أثناء أخذ العينات. علاوة على ذلك، يمكن أن يحدث تلوث خلطي فيزيائي بين المقصورات بسبب أحجام مسام غير صحيحة (أكبر)، وهو أمر يمكن معالجته بسهولة باستخدام غرسات ذات حجم مسام غشائي مناسب. كما يمكن أن يؤدي النمو الفطري المفرط أو الترسيب الواسع للغشاء الحيوي إلى تغطية الغشاء المسامي؛ ويتم معالجة ذلك عن طريق حصر التلقيحات الأولية عند OD600 = 0.1 وعدم الحضن لمدة تتجاوز 12 h. بالإضافة إلى ذلك، قد لا تتوزع الميكروبات بشكل متجانس داخل آبار الجهاز، حيث تتكتل غالباً أو تلتصق بالقرب من الغشاء، مما قد يؤدي إلى انحيازات غير متوقعة في قياسات الكثافة الضوئية. وعلاوة على ذلك، وبسبب قيام هذه الأنظمة بفصل المجموعتين فيزيائياً، فإنها لا تستطيع تكرار أو تقييم التفاعلات التي تعتمد على التلامس الفيزيائي المباشر بين الخلايا، مثل نضج الغشاء الحيوي للأنواع المختلطة، أو التجميع المشترك الميكانيكي، أو الإشارات التي تحفزها مواد الالتصاق المرتبطة بسطح جدار الخلية. وبينما توفر هذه المقاييس القائمة على الأطباق لقطة نهائية فعالة لحركية التخيط المبكرة (عند 3 h)، فإنها لا ترصد ديناميكيات النمو طويلة المدى أو السلوك المكاني. وبالنسبة للباحثين الذين يتطلب عملهم تتبعاً مستمراً في الوقت الفعلي لفترات ممتدة، قد توفر قنوات التروية المائعية الدقيقة المتخصصة أو غرف تصوير الخلايا الحية المؤتمتة بديلاً أكثر ملاءمة.
ترتبط الهندسة الخلوية ارتباطاً جوهرياً بالكفاءة الأيضية، حيث تعمل نسبة مساحة السطح إلى الحجم (SA/V) كمحرك رئيسي لامتصاص العناصر الغذائية والنقل داخل الخلايا. وفي الفطريات ثنائية الشكل والخيطية، يعمل التحول إلى النمط المورفولوجي الهيفي المستطيل كتكيف بنيوي للحفاظ على نسبة SA/V محسنة. وهذا يسمح بامتصاص العناصر الغذائية بشكل موزّع على طول جدار الخيط الممتد مع الحفاظ على العمليات الأيضية الموجهة نحو قمة الهيفة34,35,36,37. ومع ذلك، تظهر دراستنا أن القياس المورفومتري ليس متناسباً بشكل موحد عبر حالات التعدد الصبغي المختلفة وتكوينات موقع نمط التزاوج.
تكشف مجموعات البيانات المورفومترية التي تم إنشاؤها عبر بروتوكول التتبع هذا عن اتجاهات قياسية هيكلية واضحة مرتبطة بمستوى التعدد الصبغي، حيث تظهر السلالات أحادية الصيغة الصبغية باستمرار قيمًا مطلقة أصغر عبر جميع المقاييس الهندسية مقارنة بالسلالات ثنائية الصيغة الصبغية المقابلة (الشكل 5). وضمن الخلفية ثنائية الصيغة الصبغية، أظهر التكوين متماثل الزيجوت MATα/α حركية خيطية معززة (من حيث الطول والحجم) مقارنة بسلالات MATa/a أو MATa/α تحت هذه الظروف in vitro. ونظرًا لأن تعزيز تكوين الخيوط يرتبط غالبًا بزيادة القدرة على الاختراق، فمن غير الواضح لماذا يتم عزل العزلات السريرية من C. albicans في الغالب كخلايا ثنائية الصيغة الصبغية متغايرة الزيجوت (MATa/α). ومن المحتمل أن الحالة متغايرة الزيجوت، داخل مضيف يتمتع بكفاءة مناعية، توفر ميزة لياقة أوسع للاستعمار التكافلي طويل الأمد. بعبارة أخرى، فإن الخصائص الهيكلية للنمط المورفولوجي MATa/α محسنة للبقاء على قيد الحياة ضد المراقبة المناعية للمضيف. لذا، يجب أن تستفيد التحقيقات المستقبلية من أنظمة الزراعة المشتركة الموحدة هذه لتقييم اللياقة المقارنة لمختلف متماثلات الزيجوت لأنواع التزاوج بشكل منهجي تحت ضغوط انتخابية متنوعة.
وثقت الدراسات السابقة أن مورفولوجيا الفجوات، وديناميكيات الانشطار والاندماج، والتمدد الهيكلي تلعب أدواراً مهمة في إدارة الحجم الداخلي وضغط الامتلاء للخيوط الفطرية في طور الاستطالة. فعلى سبيل المثال، في مسبب لفحة الأرز Magnaporthe oryzaeتتنسق الانتقالات المتميزة بين الخيوط الفطرية الخضرية النحيلة والهياكل الغازية البصلية بشكل وثيق مع التغيرات في التنظيم الفجوي.38,39,40ومع ذلك، لم يقم البروتوكول الحالي بمراقبة ديناميكيات الفجوات بشكل مباشر أثناء C. albicans تكوين الخيوط؛ ويمثل تتبع هذه التغيرات في العضيات الداخلية فيما يتعلق بالحجم الهيكلي الكلي مساراً معرفياً للبحث المستقبلي. بالإضافة إلى ذلك، هناك حاجة إلى مزيد من الأبحاث لتحديد سبب قيام مكونات محددة من السيكريتوم المشتق من الفطريات بتحفيز حركية قياس شكلي مختلفة عن المحفزات الكيميائية المشتقة من المضيف مثل المصل.
يمكن تكييف طرق الزراعة المشتركة غير التلامسية المفصلة في هذا البروتوكول لاستقصاء التفاعلات بين الأنواع وبين الممالك المختلفة، مثل ديناميكيات الإشارات بين المجموعات البكتيرية الانتهازية والفطريات ثنائية الشكل. علاوة على ذلك، ونظراً لأن تنسيقات الأطباق ذات الـ 96 بئراً والـ 24 بئراً قابلة للتوسع، يمكن استخدام هذه المنصة الكمية لإجراء عمليات الفرز الكيميائي. وتشمل الأمثلة على ذلك تحديد مثبطات الجزيئات الصغيرة أو مركبات جديدة مضادة للفطريات لتعطيل مسارات التخيط المحفزة بالإفرازات البروتينية (secretome) بشكل انتقائي دون التأثير المباشر على حيوية الخلايا الأساسية.
الإفصاحات
يقر المؤلفون بعدم وجود أي تضارب في المصالح أو منافسات.
شكر وتقدير
تم دعم هذا العمل من خلال زمالة DBT-Wellcome Trust India Alliance المتوسطة (IA/I/19/1/504294) الممنوحة لـ RNP. كما حصل KBSS على دعم من منحة البحوث الخاصة بجامعة أحمد آباد (AU/SRG/SAS/20-21/07_KS_03.25) ومنحة SERB-Core للبحوث (URBSASE23A6/SERB/23-24/KS_02.27). الأيقونات المستخدمة في الشكل 1 مقتبسة من Servier Medical Art (https://smart.servier.com/)، والمرخصة بموجب CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/)، ومن BioArt Source، NIAID، NIH.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.22 μm مرشح حقنة PES | Millipore (Merck) | SLGPR33RS | |
| آجار آجار | HiMedia | GRM666 | |
| الجلوكوز | HiMedia | GRM016 | |
| لوح Nunc الحامل المكون من ٢٤ بئراً مع أدراج للمزارع الخلوية (0.4 μm) | Thermo Scientific | 141002 | |
| طبق متعدد الآبار Nunc BioLite بـ 96 بئر، معالج لاستزراع الخلايا، ذو قاع مسطح | Thermo Scientific | 130188 | |
| ببتون البروتياز | HiMedia | RM005 | |
| يوريدين | سيجما | U6381 | |
| مستخلص الخميرة | HiMedia | RM027 | |
| قاعدة نيتروجين الخميرة، مع كبريتات الأمونيوم، وبدون أحماض أمينية | HiMedia | M878 |
المراجع
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً