تحدد التحليلات المتكاملة للمستقلبات والنسخ والخلية الواحدة والتحليلات الوظيفية أن SHMT2 يعمل كمؤشر حيوي لإعادة البرمجة الأيضية لـ SGOC، والسلوك العدواني، وانخفاض الاستجابة المتوقعة للعلاج المناعي في سرطان الرئة الغدي.
مقالة بحثية
SHMT2: مؤشر حيوي أيضي ومناعي لسرطان الرئة الغدي الشرس
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
غالباً ما يضطرب استقلاب السيرين/الجلايسين-أحادى الكربون (SGOC) في سرطان الرئة الغدّي (LUAD)، ولكن تظل علاقته بسلوك الورم والاستجابة المتوقعة للعلاج المناعي غير محددة بشكل كامل. تم إجراء تحليل ملفات الميتابولوم لـ 23 زوجاً من أنسجة سرطان الرئة الغدّي (LUAD) وأنسجة الرئة الطبيعية المجاورة باستخدام مطيافية الكتلة بالتأين بالرش الكهربائي الاستخلاصي الداخلي. كما تم تحليل البيانات النسخية والسريرية من مجموعة بيانات سرطان الرئة الغدّي في أطلس جينوم السرطان (TCGA-LUAD) لتقييم تعبير SHMT2، والإنذار، والجينات ذات التعبير المتباين، والميزات المرتبطة بالمناعة. وتم تقييم الاستجابة المتوقعة لحصار نقاط التفتيش المناعية باستخدام تحليل خلل ووظائف واستبعاد المناعة الورمية (TIDE) وأطلس المناعة السرطانية (TCIA)، كما تم استنتاج الحساسية الدوائية باستخدام oncoPredict. استُخدمت بيانات تسلسل الحمض النووي الريبي أحادي الخلية (Single-cell RNA-seq) لفحص التوزيع الخلوي لـ SHMT2. وشمل التحقق التجريبي تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي مع النسخ العكسي (RT-qPCR)، وبصمة ويسترن (western blotting)، والكيمياء النسيجية المناعية من أطلس البروتين البشري (HPA)، وتثبيط SHMT2 بواسطة الحمض النووي الريبي قصير دبوس الشعر (shRNA) المتبوع بمقايسات التكاثر، والتئام الجروح، وتكوين المستعمرات. حدد التحليل الميتابولومي أن استقلاب الجلايسين والسيرين والثريونين هو مسار مضطرب بشكل بارز في LUAD. وكان تعبير SHMT2 مرتفعاً في LUAD ومرتبطاً بسوء البقاء على قيد الحياة بشكل عام وبخصائص مرضية سريرية سلبية. وأظهرت الأورام ذات التعبير العالي لـ SHMT2 إثراءً في البرامج النسخية المرتبطة بدورة الخلية وSGOC، ودرجات مناعية وسدوية أقل، وانخفاضاً في الاستجابة المتوقعة للعلاج المناعي. وأظهر تحليل الخلايا المفردة إثراءً نسبياً لتعبير SHMT2 في مجموعات الخلايا البائية. ومخبرياً In vitro، كان SHMT2 مفرط التعبير في خلايا LUAD، وأدى تثبيطه إلى كبح التكاثر والهجرة والنمو الاستنساخي. وبشكل جماعي، يرتبط SHMT2 بإعادة البرمجة الاستقلابية لـ SGOC، والأنماط الظاهرية الورمية العدوانية، والحالة المناعية المتدهورة في LUAD، مما يدعم أهميته المحتملة كعلامة حيوية؛ بينما يتطلب الاستهداف العلاجي مزيداً من التحقق الدوائي وفي الجسم الحي in vivo.
المقدمة
لا يزال سرطان الرئة الغدي (LUAD) سببًا رئيسيًا للوفيات المرتبطة بالسرطان في جميع أنحاء العالم، وذلك بسبب التباين الجزيئي الواضح، والميل المبكر للانتشار، والمحدودية في ديمومة استراتيجيات العلاج الحالية1,2. وعلى الرغم من أن مثبطات نقاط التفتيش المناعية (ICIs) قد أعادت تشكيل المشهد العلاجي لسرطان LUAD، إلا أن الفائدة السريرية المستدامة تقتصر على مجموعة فرعية من المرضى، وغالبًا ما يتم ملاحظة المقاومة الأولية والمكتسبة3,4. ويؤكد هذا التباين الملحوظ بين المرضى الحاجة الماسة إلى تحديد المحددات البيولوجية التي تشكل البيئة الدقيقة المناعية للورم وتتحكم في الاستجابة للعلاج المناعي، مع تحديد نقاط الضعف القابلة للاستهداف التي يمكن الاستفادة منها لتحسين تصنيف المرضى ونتائج العلاج.
تعد إعادة البرمجة الأيضية سمة مركزية للتطور الخبيث5. ومن بين البرامج الأيضية، يربط أيض SGOC المدخلات التحليلية السكرية بأيض الأحماض الأمينية وتخليق النيوكليوتيدات، مما يوفر وحدات الكربون الواحد لإنتاج البيورين/بيريميدين وتوليد المانحات الميثيلية6. وإلى جانب إنتاج الكتلة الحيوية، يساهم أيض SGOC في التوازن المختزل ويتداخل مع دورة الميثيونين للتأثير على ميثيلية DNA و RNA والهستونات، مما يضعه في نقطة التقاء التكاثر والتنظيم فوق الجيني7,8. يقوم سيرين هيدروكسي ميثيل ترانسفيراز 2 (SHMT2)، وهو النظير الميتوكوندري لسيرين هيدروكسي ميثيل ترانسفيراز، بتحويل السيرين إلى جلايسين مع توليد 5,10-methylene-tetrahydrofolate، ويشكل نقطة دخول رئيسية لإمداد الميتوكوندريا بالكربون الواحد ضمن شبكة SGOC9. يرتفع تعبير SHMT2 بشكل غير طبيعي في العديد من الأورام الخبيثة، وارتبط بتعزيز التكاثر والغزو والمقاومة العلاجية والتكيف مع الإجهاد التأكسدي10,11,12,13. كما يتقاطع SHMT2 مع إشارات الالتهاب من خلال معقد BRISC، رغم أن الآلية المناعية المباشرة التي يقودها SHMT2 في LUAD لا تزال بحاجة إلى إثبات14,15. وبناءً على ذلك، يتطلب تقييم متكامل معرفة ما إذا كان SHMT2 يمثل نمطاً ظاهرياً أيضياً ذا دلالة سريرية في LUAD وكيفية ارتباطه بخصائص البيئة المجهرية المناعية والاستجابة المتوقعة للعلاج المناعي.
يُعد التفاعل ثنائي الاتجاه بين استقلاب الورم والمناعة المضادة للأورام محورياً في بيولوجيا السرطان المعاصرة16. إذ يمكن للخلايا الورمية أن تُضعف الكفاءة المناعية من خلال الاستنزاف التنافسي للمغذيات، وتراكم المستقلبات المعدلة للمناعة، والاقتران الاستقلابي-فوق الجيني الذي يعيد صياغة تمايز الخلايا المناعية وبرامج الخلايا المؤثرة7,16,17. وقد يؤثر ارتفاع استقلاب الكربون الواحد على البرامج المعتمدة على الميثيلة واللياقة الاستقلابية في الخلايا التائية، غير أن اتجاه وحجم هذه التأثيرات يعتمدان على نوع الخلية وسياق المغذيات17. كما يمتد التنظيم المناعي التكيفي إلى ما هو أبعد من الخلايا التائية؛ حيث ارتبطت الخلايا البائية، والاستجابات للأجسام المضادة، وتقديم المستضدات، والبنى اللمفاوية الثالثية (TLS) بفعالية العلاج المناعي18. وتدفع هذه الملاحظات نحو إجراء تحليل متعدد الطبقات يمكنه وضع مرشح استقلابي ضمن سياقات الورم الكلي، والخلايا المفردة، والسياقات الوظيفية، دون افتراض أن التطابق بين المنصات المختلفة وحده يثبت السببية.
على عكس التصميم القائم على الميتابولوميات فقط، والذي يحدد المستقلبات المتغيرة دون تحديد مصدرها الخلوي أو صلتها المظهرية، وعلى عكس التصميم القائم على النسخ الشامل (bulk-transcriptomics) فقط، والذي قد يستنتج نشاط المسار دون ملاحظة تغيرات المستقلبات بشكل مباشر، يدمج سير العمل الحالي بين الميتابولوميات للأنسجة المزدوجة، وعلم النسخ الشامل والخلية الواحدة، والمقايسات الوظيفية in vitro. ويدعم التطابق عبر هذه الطبقات تحديد أولويات المرشحين ويقلل الاعتماد على أي منصة تحليلية واحدة؛ ومع ذلك، تظل الأدلة الناتجة ارتباطية فيما يتعلق بالتنظيم المناعي ما لم يتم التحقق منها في أنظمة الزراعة المشتركة المناعية أو أنظمة in vivo.
استُخدمت أولاً تحليلات الميتابولوميات للأنسجة المزدوجة من سرطان الرئة الغدي (LUAD) وأنسجة الرئة الطبيعية المجاورة لتحديد الاضطرابات الأيضية المرتبطة بالجلايسين. ثم دُمجت البيانات النسخية والسريرية من TCGA لتقييم SHMT2، وهو إنزيم SGOC ميتوكوندري دعمت اختياره صلة المسار الأيضي، وزيادة تنظيمه في الأورام، والارتباط الإنذاري، وقابلية التحقق التجريبي. لاحقاً، أدى تحليل البيئة الدقيقة المناعية، ورسم الخرائط أحادية الخلية، والتحقق الوظيفي in vitro إلى إنشاء إطار عمل متعدد الطبقات لتوليد الفرضيات يشمل التغيرات الأيضية، واختلال تنظيم الإنزيمات، والتوزيع الخلوي، والنمط الظاهري للخلايا الورمية. من الناحية العملية، يتطلب سير العمل هذا أنسجة مزدوجة مجمدة حديثاً. ويُعد تحديد المستقلبات بواسطة مطياف الكتلة شبه كمي؛ لذا يجب التحقق من المستقلبات المرشحة بشكل مستقل. كما تُعتبر تنبؤات العلاج المناعي (TIDE/TCIA) واستنتاجات الحساسية الدوائية (oncoPredict) تقديرات حاسوبية قائمة على النسخ لا تحل محل التحقق السريري في المجموعات التي عولجت بمثبطات نقاط التفتيش المناعية (ICI) في الواقع العملي، ويجب تفسيرها على أنها أدوات لتوليد الفرضيات.
البروتوكول
تمت الموافقة على هذه الدراسة من قبل مجلس المراجعة المؤسسية في المستشفى التابع الثاني لجامعة نانشانغ (CDEFYYLK 3-05). كما تم الحصول على موافقة مستنيرة مكتوبة من جميع المرضى قبل جمع العينات، وذلك وفقاً لإعلان هلسنكي. وقد تم تصدير البيانات الخام وتحليلها باستخدام البرمجيات والموارد الإلكترونية المدرجة في الـ جدول المواد.
جمع الأنسجة السريرية
جُمعت عينات متطابقة من أنسجة الأورام وأنسجة الرئة الطبيعية البعيدة من مرضى خضعوا لاستئصال جراحي بين يناير ويونيو 2024، وشُخصوا مرضياً بالإصابة بسرطان الرئة الغدي الغازي. قام الجراح الذي أجرى العملية باستئصال العينات، ثم عولجت خلال 5 min من الاستئصال، وجُمدت فوراً بالتجميد السريع في النيتروجين السائل، وخُزنت حتى وقت التحليل. تتوفر الخصائص السريرية المرضية مجهولة الهوية في الجدول التكميلي 1.
مطيافية الكتلة بالتأين بالرذاذ الإلكتروني الاستخلاصي الداخلي (iEESI-MS) للتمييز بين سرطان الرئة الغدي (LUAD) وأنسجة الرئة الطبيعية
تم تحليل عينات الأنسجة (1 mm3) بواسطة تقنية iEESI-MS باستخدام مقياس طيف كتلة هجين يجمع بين مصيدة الأيونات الخطية والمصيدة المدارية الكهروسكونية في وضع الأيونات الموجبة. تم ضخ مذيب الاستخلاص الميثانولي (100%) بمعدل 3.0 µL/min مع جهد انحياز قدره +5 kV. كان نطاق مسح iEESI-MS1 هو m/z 50–2,000. واستخدم iEESI-MS2 تفككاً مستحثاً بالتصادم بطاقة تصادم معيرة تتراوح بين 25–35%، ونافذة عزل قدرها m/z 2.0، وزمن استبعاد ديناميكي قدره 30 s. كما تم الحفاظ على خطأ في الكتلة <5 ppm من خلال المعايرة الخارجية اليومية وفقاً للإجراء القياسي للجهاز. وبعد إجراء التسوية بالوسيط، وتحويل log₂، والقياس التلقائي (autoscaling)، تم تنفيذ تحليل OPLS-DA مع 200 اختبار تبادلي. تم توصيف المستقلبات باستخدام HMDB، وأجري إثراء المسارات باستخدام توصيفات KEGG.
معالجة بيانات مطيافية الكتلة وتحديد النواتج الأيضية
تم تطبيع بيانات MS الخام باستخدام التطبيع الوسيط، متبوعاً بتحويل log₂ والتحجيم التلقائي (تمركز المتوسط والقسمة على الانحراف المعياري لكل متغير). استُخدم تحليل التمييز بالمربعات الصغرى الجزئية المتعامدة (OPLS-DA) لتحديد ميزات m/z التمييزية. اعتبرت الميزات تفاضلية عندما كانت VIP > 1.0، و|log₂(FC)| > 0.58، وp < 0.05. خضعت الميزات التفاضلية لتحليل MS2 وتم توصيفها باستخدام قاعدة بيانات الميتابولوم البشرية (Human Metabolome Database). ثم استُخدم إثراء المسارات القائم على KEGG لتحديد المسارات المتغيرة وتحديد أولويات الإنزيمات ذات الصلة بالمسار. تتوفر الميتابوليتات التفاضلية الموصوفة في الجدول التكميلي 2.
تحليلات تعبير SHMT2، والبقاء على قيد الحياة، والارتباط بالخصائص العيادية المرضية استناداً إلى TCGA
تم تنزيل ملفات التعبير الجيني لـ RNA-seq والتعليقات التوضيحية السريرية المقابلة لها لـ TCGA-LUAD من Genomic Data Commons في 18 ديسمبر 2025؛ للأورام (n = 542) وللأنسجة الطبيعية (n = 59). حُوّلت قيم عدد الشظايا لكل كيلو قاعدة من النسخة لكل مليون قراءة مصنفة (FPKM) إلى log2(FPKM + 1). شملت التحليلات التنبؤية فقط العينات ذات المعلومات الكاملة حول البقاء على قيد الحياة. تمت مقارنة قيم تعبير SHMT2 في الأورام والأنسجة الطبيعية باستخدام اختبار ويلكوكسون لمجموع الرتب. تم تقسيم المرضى إلى مجموعات ذات تعبير عالٍ (SHMT2-high) وتعبير منخفض (SHMT2-low) بناءً على القيمة الوسيطة للتعبير. تم تقييم البقاء الإجمالي على قيد الحياة بواسطة تحليل كابلان-ماير واختبار log-rank. كما تم تقييم الارتباطات مع مرحلة الورم والعقدة والنقائل (TNM)، والعمر، والجنس باستخدام اختبارات مربع كاي أو اختبارات ويلكوكسون، حسبما كان مناسباً. تم إنشاء منحنيات خصائص تشغيل المستقبل (ROC) المعتمدة على الوقت للبقاء على قيد الحياة لمدة 1 و3 و5 سنوات. كانت جميع الاختبارات الإحصائية ثنائية الجانب.
تحليل التعبير التفاضلي والإثراء الوظيفي (GO/KEGG)
تم تحديد الجينات ذات التعبير التفاضلي (DEGs) بين المجموعات ذات التعبير المرتفع عن SHMT2 والمجموعات ذات التعبير المنخفض عن SHMT2 باستخدام معدل اكتشاف خاطئ < 0.05 و |log₂(FC)| ≥ 1. عُرضت النتائج في شكل مخطط بركاني (volcano plot) وخريطة حرارية لأهم 40 جينًا من الجينات ذات التعبير التفاضلي مع تطبيع درجة z لكل صف. واستخدمت تحليلات إثراء الوجود الجيني (GO) ومسارات KEGG قيمة p < 0.05 معدلة. تم الحصول على تعليقات الجينات البشرية من Ensembl في ديسمبر 2025.
التسلل المناعي، والتنبؤ بالاستجابة للعلاج المناعي، واستنتاج الحساسية للأدوية
تم حساب درجات البيئة الدقيقة للورم، بما في ذلك ImmuneScore و StromalScore و ESTIMATEScore، باستخدام ESTIMATE. واستُدل على تكوين الخلايا المناعية باستخدام CIBERSORT مع مجموعة مرجعية LM22 (التي تم تنزيلها في 5 ديسمبر 2025)، و 1,000 عملية تبديل، مع الاحتفاظ بالعينات التي كانت فيها قيمة p لفك الالتفاف < 0.05. كما أُجريت مقارنات بين المجموعات للأورام ذات التعبير العالي عن SHMT2 وتلك ذات التعبير المنخفض عنه. وتم تمثيل ارتباطات Spearman بين SHMT2 والجينات المرتبطة بنقاط التفتيش المناعية في شكل مصفوفة ارتباط. وحُصل على درجات النمط الظاهري المناعي (Immunophenoscores) من TCIA، واستُخدم TIDE للتنبؤ التكميلي للاستجابة للعلاج المناعي. واستُدل على الحساسية الدوائية باستخدام oncoPredict المدرب على إصدار GDSC لشهر ديسمبر 2023 لتقدير قيم IC50. واستُخدمت اختبارات Wilcoxon للفروق بين المجموعات، وارتباطات Spearman للارتباطات المستمرة.
تحليل تسلسل الحمض النووي الريبوزي أحادي الخلية (Single-cell RNA-seq) لسرطان الرئة الغدّي (LUAD)
بيانات النسخ النوعي للخلية الواحدة19 تم تنزيلها من قاعدة بيانات Gene Expression Omnibus في 20 ديسمبر 2025، ثم جرى تحليلها. أما الخلايا التي تضمنت ما بين 200 و6,000 من السمات المكتشفة و < تم الاحتفاظ بـ 10% من النسخ الميتوكوندرية. عُدلت الأعداد باستخدام LogNormalize مع عامل قياس قدره 10,000؛ واختيرت أعلى 2,000 جين متغير، كما تم قياس كافة الجينات. استخدم تحليل المكونات الرئيسية أول 20 مكوناً، واستخدم تحليل UMAP الأبعاد من 1 إلى 20، بينما استخدم التجميع دقة قدرها 0.5. تم تعيين أنواع الخلايا باستخدام مرجع أطلس الخلايا البشرية الأولية (Human Primary Cell Atlas). وقورنت نسب أنواع الخلايا بين العينات الورمية والعينات الطبيعية، وأنشئت مصفوفات ارتباط سبيرمان. كما فُحصت توزيعات SHMT2 عبر أنواع الخلايا المعينة. واستُدل على حالات الدورة الخلوية باستخدام cyclone وتم تمثيلها بصرياً باستخدام المخططات الجبلية (ridge plots).
زراعة الخلايا
تم استزراع خلايا BEAS-2B وH1299 وA549 في 37 °C في حاضنة مرطبة مضبوطة على 5% CO22 ورطوبة نسبية تبلغ 95% تقريباً، باستخدام الأوساط والمكملات المحددة في جدول المواد.
تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي مع النسخ العكسي (RT-qPCR)
تم استخلاص الحمض النووي الريبي الكلي (Total RNA) باستخدام كاشف استخلاص RNA يعتمد على الفينول. ثم تم تحويل RNA المستخلص إلى cDNA عن طريق النسخ العكسي باستخدام مزيج رئيسي للنسخ العكسي (reverse-transcription master mix). أُجريت عملية النسخ العكسي في نظام بحجم 20 µL، حيث تمت إزالة DNA الجينومي عند 42 °C لمدة 2 min، والنسخ العكسي عند 50 °C لمدة 15 min، والإنهاء عند 85 °C لمدة 5 s. كما أُجري تفاعل البوليميراز المتسلسل الكمي (Quantitative PCR) باستخدام مزيج qPCR رئيسي يعتمد على صبغة مرتبطة بـ DNA على نظام PCR في الوقت الحقيقي، وذلك باستخدام 95 °C لمدة 3 min، تلتها 40 دورة من 95 °C لمدة 10 s و 60 °C لمدة 30 s، ثم خطوة منحنى الانصهار (melt-curve) عند 95 °C لمدة 15 s، و 60 °C لمدة 60 s، و 95 °C لمدة 15 s. نُفذت جميع التفاعلات في ثلاث مكررات. وحُسب التعبير النسبي باستخدام طريقة 2−ΔΔCt مع اعتبار GAPDH جين التدبير المنزلي (housekeeping gene). حُضرت المحاليل المخزنة من البادئات (Primers) بتركيز 10 µM في ماء مقطر مزدوج وخُزنت عند -20 °C في الظلام. تتوفر تسلسلات البادئات في الجدول التكميلي 3.
لطخة ويسترن
تم استخلاص البروتين الخلوي الكلي باستخدام منظم مقايسة الترسيب المناعي الإشعاعي على الثلج لمدة 30 min، ثم طُرد مركزياً عند 12,000 x g لمدة 15 min عند 4 °C. وفُصلت البروتينات بواسطة الفصل الكهربائي للهلام بولي أكريلاميد-دوديسيل كبريتات الصوديوم بتركيز 12%، ونُقلت إلى أغشية بوليفينيليدين فلوريد بمسامية 0.22 µm. حُجبت الأغشية باستخدام حليب خالٍ من الدسم بتركيز 5% (w/v) في محلول ملحي منظم بالتريس مع 0.1% Tween 20 (TBST) لمدة 2 h في درجة حرارة الغرفة، ثم حُضنت طوال الليل عند 4 °C مع أجسام مضادة أولية لـ anti-SHMT2 (بنسبة 1:1,000) و anti-GAPDH (بنسبة 1:2,000) مخففة في TBST يحتوي على 5% حليب خالٍ من الدسم. وبعد ثلاث غسلات مدة كل منها 8 min باستخدام TBST (20 mM Tris-HCl، 150 mM NaCl، 0.1% Tween-20)، حُضنت الأغشية مع أجسام مضادة ثانوية مقترنة ببيروكسيداز الفجل (بنسبة 1:5,000) لمدة 1 h في درجة حرارة الغرفة. وقد تم إظهار الإشارات باستخدام ركيزة التألق الكيميائي المحسنة التي تم تحضيرها بخلط أحجام متساوية من المحلولين A و B، وحُضنت لمدة 2 min في درجة حرارة الغرفة في الظلام، ثم التُقطت باستخدام نظام تصوير التألق الكيميائي.
التحقق من صحة الكيمياء النسيجية المناعية لـ HPA
تم تقييم أنماط تعبير بروتين SHMT2 في أنسجة الرئة الطبيعية وسرطان الرئة الغدي (LUAD) باستخدام أطلس البروتينات البشرية (HPA). تم البحث عن "SHMT2" في HPA، وتم تنزيل صور تمثيلية للكيمياء النسيجية المناعية (IHC) والملاحظات المرضية المرتبطة بها للمقارنة. وللحد من الانحياز الناتج عن خصوصية الأجسام المضادة، تم إعطاء الأولوية للأجسام المضادة ذات مستويات التحقق الأعلى في HPA. وحيثما أمكن، تمت مقارنة نتائج IHC من أجسام مضادة متعددة (HPA020543 و HPA020549).
تثبيط SHMT2 في خلايا LUAD
لبحث الدور الجوهري لبروتين SHMT2 داخل خلايا الورم في سرطان الرئة الغدي (LUAD)، تم إجراء تثبيط لـ SHMT2 في خلايا H1299 وA549 باستخدام shRNA. حُمل الـ shRNA بواسطة ناقل فيروسي لينتي (lentiviral vector) يتم تحفيزه بواسطة محفز H1 وقابل للاختيار باستخدام البيوروميسين (puromycin)؛ كما تم إجراء ترانسفكشن مشترك للبلازميدات التغليفية أثناء إنتاج الفيروس. استهدف sh-SHMT2 المنطقة المشفرة لـ SHMT2 البشري، بينما كان sh-NC عبارة عن تحكم سلبي عشوائي. كانت المخزونات الفيروسية المحضرة ذات عيار ≥ 1 x 10⁸ وحدة نقل/mL وحُفظت عند -80 °C. تم إصابة الخلايا بجسيمات sh-SHMT2 أو sh-NC اللينتيفيروسية المحضرة والموضحة في جدول المواد. بعد مرور 48 h، تم تقييم كفاءة التثبيط بواسطة RT-qPCR واللطخة الغربية (western blotting). استُخدمت فقط الخلايا التي تم التأكد من إسكات SHMT2 فيها في مقاييس التكاثر والهجرة وتكوين المستعمرات.
مقايسة تكاثر الخلايا
تم تقييم تكاثر الخلايا باستخدام مقايسة CCK-8. زُرعت خلايا H1299 و A549 المنقولة في أطباق ذات 96 بئراً بمعدل 5 x 10³ خلية لكل بئر في ست مكررات. وفي الأيام 1 و 2 و 3 و 4 و 5، أُضيف 10 µL من كاشف CCK-8 إلى كل بئر (10% من حجم وسط الزرع) وحُضنت لمدة 2 h عند 37 °C. قِيس الامتصاصية عند 450 nm واستُخدمت كمؤشر لقراءة حيوية الخلايا.
مقايسة التئام الجروح
تم تقييم هجرة الخلايا باستخدام مقايسة التئام الجروح. زُرعت خلايا H1299 وA549 المنقولة جينياً في أطباق مكونة من 6 آبار واستُنبتت حتى تصل درجة الالتقاء إلى 90–95%. تم إحداث جرح خطي باستخدام رأس ماصة sterile سعة 200 µL، وأُزيلت الخلايا المنفصلة عن طريق الغسل اللطيف بمحلول ملحي منظم بالفوسفات. بعد ذلك، حُفظت الخلايا في وسط خالٍ من المصل أو منخفض المصل، وصُوِّرت منطقة الجرح عند الساعة 0 ساعة و24 ساعة باستخدام مجهر مقلوب. تم قياس كمية انغلاق الجرح باستخدام برنامج تحليل الصور المدرج في جدول المواد، وحُسبت كنسبة مئوية للانخفاض بالنسبة لمساحة الجرح الأولية.
مقايسة تكوين المستعمرات
لإجراء تحليل تكوين المستعمرات، تم استزراع خلايا H1299 وA549 المنقولة في أطباق ذات 6 آبار بمعدل 800 خلية لكل بئر، وحُضنت لمدة تتراوح بين 10-14 يومًا تقريبًا حتى تشكلت مستعمرات مرئية، مع المراقبة المجهرية أثناء عملية الاستزراع. ثُبتت المستعمرات باستخدام 4% paraformaldehyde لمدة 30 دقيقة في درجة حرارة الغرفة، ثم صُبغت بـ 0.1% crystal violet لمدة 15 دقيقة في درجة حرارة الغرفة. تم عد المستعمرات التي تحتوي على أكثر من 50 خلية باستخدام المجهر الضوئي.
التحليل الإحصائي للتجارب in vitro
أُجريت جميع التجارب in vitro بشكل مستقل ثلاث مرات على الأقل. وعُرضت البيانات في صورة المتوسط ± الانحراف المعياري. استُخدم اختبار t-test لـ Student للمقارنات بين مجموعتين، واعتُبرت قيمة p < 0.05 دالة إحصائيًا.
النتائج
يكشف تحليل الأيض النسيجي عن إعادة تشكيل أيضية واسعة النطاق في سرطان الرئة الغدي (LUAD) مع إثراء بارز للمسارات المرتبطة بالجليسين
تم تحليل أنسجة الورم وأنسجة الرئة الطبيعية المجاورة المقترنة من 23 مريضاً مصاباً بـ LUAD باستخدام تقنية iEESI-MS المباشرة؛ وتتوفر خصائص المرضى وتوصيفات المستقلبات التفاضلية في الجدول التكميلي 1 والجدول التكميلي 2. بعد إجراء تطبيع log2، أظهر تحليل OPLS-DA فصلاً واضحاً بين الملامح الأيضية للورم والأنسجة الطبيعية (R2X = 0.824, R2Y = 0.968, Q2 = 0.757) (الشكل 1A). كما تم دعم موثوقية النموذج من خلال اختبار التبديل لـ 200 مرة، حيث كانت نقاط التقاطع R2 = 0.789 و Q2 = −0.451 (الشكل 1B). وباستخدام معايير محددة مسبقاً—أهمية المتغير في الإسقاط (VIP) > 1، و|log2(FC)| > 0.58، وp < 0.05؛ تم تحديد 45 سمة m/z تفاضلية (الشكل 1C). وأدى الحصول على بيانات MS/MS وتوصيف HMDB إلى تحديد ستة مستقلبات داخلية متغيرة، بما في ذلك glycine و serine و butanone (الجدول التكميلي 2). وحدد إثراء KEGG وجود 11 مساراً، كان من أبرزها استقلاب glycine و serine و threonine (الشكل 1D)، مما يشير إلى إعادة تشكيل أيضي مرتبط بـ glycine في حالات LUAD.
تؤكد قاعدة بيانات TCGA-LUAD زيادة تنظيم SHMT2 في الأورام وتربط التعبير العالي بسوء الإنذار
تم إعطاء الأولوية لـ SHMT2 من خلال تقارب أربعة معايير: موقعه المباشر عند نقطة الدخول الميتوكوندرية لاستقلاب SGOC، والزيادة الملحوظة في التعبير المرتبط بالأورام في TCGA-LUAD، والارتباط بالبقاء على قيد الحياة بشكل عام، وملاءمته للتدخل التجريبي. أظهرت بيانات RNA-seq من TCGA-LUAD أن تعبير log2(FPKM + 1) لـ SHMT2 كان أعلى بكثير في الأورام منه في أنسجة الرئة الطبيعية (الشكل 2A). وأظهر تحليل كابلان-ماير باستخدام نقطة القطع المتوسطة أن التعبير العالي لـ SHMT2 كان مرتبطاً بتدهور معدلات البقاء على قيد الحياة بشكل عام (الشكل 2B). واقترحت التحليلات السريرية المرضية الاستكشافية وجود ارتباطات إضافية مع مرحلة الورم وحالة العقد اللمفاوية (الشكل 2C)، بينما أعطى تحليل ROC المعتمد على الوقت قيم AUC > 0.70 عند 1 و3 و5 سنوات (الشكل 2D).
تُظهر الأورام ذات المستويات العالية من SHMT2 برامج نسخ غنية بتقدم الدورة الخلوية ومحور SGOC الأيضي
لتحديد البرامج البيولوجية المرتبطة بـ SHMT2، تم تقسيم أورام TCGA-LUAD عند قيمة التعبير المتوسطة لـ SHMT2 إلى مجموعتين: مجموعة ذات تعبير مرتفع (SHMT2-high) ومجموعة ذات تعبير منخفض (SHMT2-low) قبل إجراء تحليل التعبير التفاضلي (الشكل 3A). وأظهرت الخريطة الحرارية لأعلى 40 جيناً ذات تعبير تفاضلي أنماط تعبير متميزة لكل مجموعة (الشكل 3B). كما حدد تحليل إثراء GO كلاً من تقدم الدورة الخلوية، وفصل الكروموسومات، والانقسام الميتوزي (الشكل 3C)، مما وفر الأساس التحليلي لوصف نمط ظاهري نسخي تكاثري مرتبط بالتعبير المرتفع لـ SHMT2. وسلط إثراء KEGG الضوء أيضاً على استقلاب الجلايسين والسيرين والثريونين (الشكل 3D)، مما يشير إلى وجود نسخ منسق مرتبط بـ SGOC بدلاً من مجرد تغير معزول في SHMT2.
يرتبط التعبير العالي لـ SHMT2 ببيئة مجهرية ذات مناعة ضعيفة، وانخفاض في الفائدة المتوقعة من العلاج المناعي، وأنماط متميزة من الحساسية الدوائية
كشف تحليل خصائص البيئة الدقيقة للورم باستخدام ESTIMATE عن قيم أقل لـ ImmuneScore و StromalScore في المجموعة ذات التعبير العالي عن SHMT2 (p < 0.001) (الشكل 4A). وأشار تحليل تفكيك CIBERSORT إلى انخفاض نسب خلايا B الذاكرة، وخلايا CD4 T الذاكرة الراحة، والوحيدات، والخلايا الصارية الراحة، إلى جانب ارتفاع نسب خلايا CD4 T الذاكرة المنشطة وخلايا T المساعدة الجريبية (الشكل 4B). كما حدد تحليل الارتباط وجود ارتباطات إيجابية لـ SHMT2 مع BTLA و TNFSF15 و CD28، وارتباطات سلبية مع CD160 و TNFSF14 (الشكل 4C). وأشار التنبؤ التكميلي القائم على النسخ باستخدام TIDE و immunophenoscores المشتقة من TCIA إلى انخفاض الفائدة المتوقعة من العلاج المناعي في الأورام ذات التعبير العالي عن SHMT2 (p < 0.05) (الشكل 4D). لم تُشتق هذه التقديرات من مجموعة من مرضى LUAD الذين خضعوا لعلاج سريري، وبالتالي فهي لا تثبت وجود مقاومة فعلية للعلاج.
تم استنتاج الحساسية للأدوية حاسوبيًا بدلاً من قياسها تجريبيًا. أظهرت الأورام ذات التعبير العالي لـ SHMT2 قيم IC50 متوقعة أقل لمثبط glycogen synthase kinase-3 وعقار selumetinib، ولكنها أظهرت حساسية متوقعة أقل لعقار talazoparib ومثبط PLK1 (الشكل 4E–H). ويظهر انخفاض الحساسية المتوقعة لتسعة عوامل إضافية، بما في ذلك cytarabine وirinotecan وpalbociclib، في الشكل التكميلي 1A–I. تعد هذه النتائج فرضيات مرشحة ولا تثبت الفعالية السريرية أو الفارماكولوجية.
يكشف تحليل الخلية الواحدة عن تركيب خلوي متميز في سرطان الرئة الغدي (LUAD) ويحدد الخلايا البائية (B cells) كالمجموعة السائدة التي تعبر عن SHMT2
لفحص التوزيع الخلوي لـ SHMT2 ضمن البيئة الدقيقة للورم، تم تحليل بيانات تسلسل الحمض النووي الريبي أحادي الخلية (single-cell RNA-seq) لسرطان الرئة الغدّي (LUAD). حدد تجميع UMAP الخلايا البائية، والخلايا البطانية، والخلايا الطلائية، والخلايا التائية، ومجموعات خلوية رئيسية أخرى (الشكل 5A). اختلفت نسب أنواع الخلايا بين الورم والأنسجة الطبيعية المجاورة (الشكل 5B–C)، وكان هناك ارتباط إيجابي بين نسب الخلايا البائية والتائية (p < 0.001) (الشكل 5D). كان تعبير SHMT2 غنياً نسبياً في مجموعة الخلايا البائية، ولكن كان من الممكن اكتشافه أيضاً في الخلايا الطلائية (الشكل 5E). ونظراً لأن الكشف عن النسخ وحده لا يحدد الوظيفة الخلوية أو الحالة الخبيثة، فقد تم تفسير هذه النتائج كفرضية للتوطن. كما تم فحص الدور الذاتي لـ SHMT2 في الخلايا الورمية بشكل منفصل في خطوط خلايا LUAD.
أُجري تحليل دورة الخلية على مستوى الخلية الواحدة عن طريق حساب درجات G1 وS وG2/M المعيرة عبر أنواع الخلايا. وقد تركزت درجات G1 بالقرب من الصفر، بينما أظهرت درجات S وG2/M توزيعات أوسع (الشكل التكميلي 2) وتغاير ملحوظ في أنواع الخلايا (الشكل 5Fوتشير هذه النتائج إلى وجود تباين في الحالة التكاثرية ضمن البيئة المجهرية لسرطان الرئة الغدي (LUAD)، وهي تتفق مع سمات الدورة الخلوية والانقسام الفتيلي التي تم تحديدها في تحليلات GO/KEGG الشاملة.
يؤكد التحقق التجريبي وجود تعبير مفرط لبروتين SHMT2 ويوضح أن تثبيط SHMT2 يثبط الأنماط الظاهرية الخبيثة في خلايا LUAD
للتحقق من النتائج المعلوماتية الحيوية وتقييم الدور الجوهري لـ SHMT2 داخل الخلايا الورمية، تم فحص التعبير أولاً في الخلايا الظهارية القصبية الطبيعية (BEAS-2B) وخطوط خلايا LUAD (H1299 و A549)، بما يتفق مع رصده في بيانات TCGA الكلية والخلايا الظهارية في تحليل الخلية الواحدة (الشكل 5E). أظهر تحليل RT-qPCR مستويات أعلى من mRNA لـ SHMT2 في خلايا H1299 و A549 مقارنة بخلايا BEAS-2B (الشكل 6A)، وأكد تحليل لطخة ويسترن زيادة التعبير البروتيني (الشكل 6B–C). كما أظهرت صور الكيمياء النسيجية المناعية الممثلة من HPA صبغاً أقوى لـ SHMT2 في LUAD مقارنة بأنسجة الرئة الطبيعية (الشكل 6D). ولمزيد من الاستقصاء حول الوظيفة البيولوجية لـ SHMT2 في LUAD، تم إسكات SHMT2 في خلايا H1299 و A549 باستخدام shRNA. وأكد تحليل RT-qPCR أن التعبير عن mRNA لـ SHMT2 قد انخفض بشكل ملحوظ في مجموعات sh-SHMT2 مقارنة بمجموعات sh-NC في كلا الخطين الخلويين (الشكل 6E). وبشكل متسق، أظهر تحليل لطخة ويسترن تخفيضاً فعالاً في التعبير البروتيني لـ SHMT2 بعد عملية الإسكات (الشكل 6F–G).
أظهرت المقايسات الوظيفية أن تثبيط SHMT2 أدى إلى إضعاف النمط الظاهري الخبيث لخلايا LUAD بشكل ملحوظ. وكشفت مقايسات CCK-8 أن إسكات SHMT2 ثبّط بشكل واضح القدرة التكاثرية لكل من خلايا H1299 وA549، معما أصبح الفرق أكثر وضوحاً بمرور الوقت (الشكل 6Hأظهرت مقايسات التئام الجروح كذلك أن استنفاد SHMT2 قد قلل بشكل كبير من القدرة الهجرية لكلا الخطين الخلويين لسرطان الرئة الغدي (LUAD) مقارنة بالخلايا الضابطة (الشكل 6Iوبالمثل، أظهرت مقايسات تكوين المستعمرات أن تثبيط SHMT2 أدى إلى انخفاض ملحوظ في القدرة على تكوين المستعمرات في خلايا H1299 وA549 (الشكل 6Jوبشكل جماعي، تشير هذه النتائج إلى أن SHMT2 يعزز تكاثر خلايا LUAD وهجرتها وقدرتها على تكوين المستعمرات، مما يدعم دوره المعزز للأورام في LUAD.
توفير البيانات:
جميع البيانات الخام التي تدعم نتائج هذه الدراسة، بما في ذلك البيانات الأساسية للأشكال، متاحة للعامة في Zenodo على الرابط https://doi.org/10.5281/zenodo.20676134.
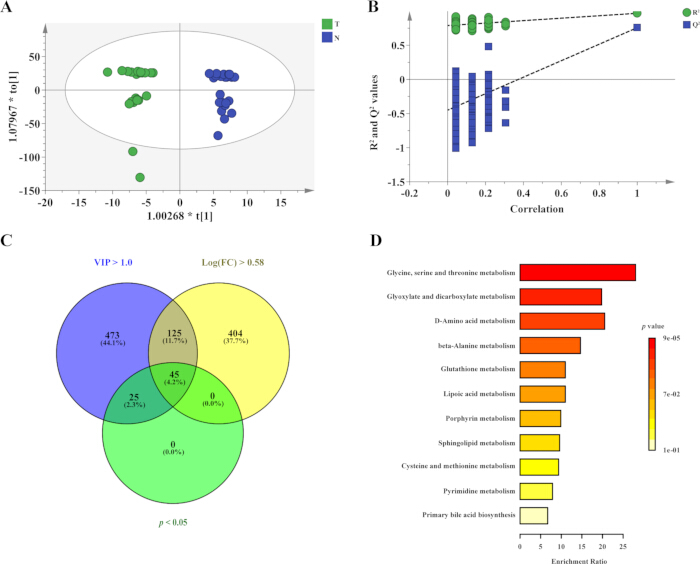
الشكل 1: تحليل الميتابولوميات للأنسجة يكشف عن إعادة برمجة أيضية مرتبطة بالجلايسين في LUAD. (A) مخطط درجات OPLS-DA يظهر الفصل بين أنسجة LUAD (T، اللون الأخضر) والأنسجة الطبيعية المجاورة المقترنة (N، اللون الأزرق). (B) اختبار التبديل لتقييم استقرار وأداء التنبؤ لنموذج OPLS-DA بناءً على قيم R2 و Q2. (C) مخطط فين يوضح تداخل السمات التفاضلية التي تم فحصها بناءً على درجة VIP > 1.0، و |log2(FC)| > 0.58، و p < 0.05. تم الاحتفاظ بـ 45 سمة. (D) تحليل إثراء مجموعة المستقلبات للمستقلبات التفاضلية بناءً على KEGG. يشير طول الشريط إلى نسبة الإثراء وتمثل كثافة اللون قيمة p value. الاختصارات: VIP = الأهمية المتغيرة في الإسقاط؛ FC = التغير في الطية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
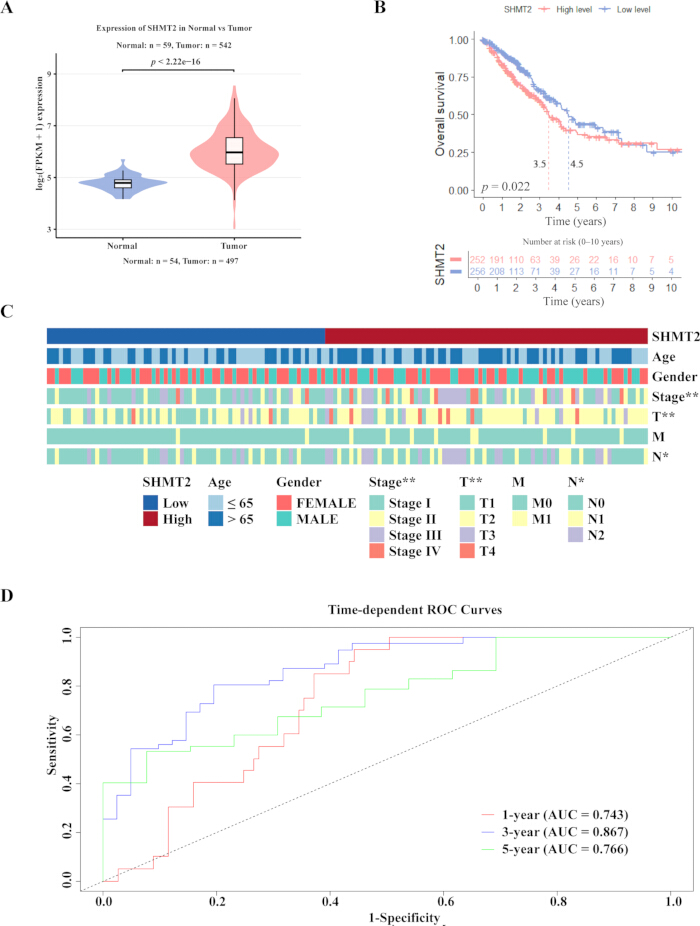
الشكل 2: يزداد تعبير SHMT2 في LUAD ويتنبأ بإنذار غير مواتٍ في TCGA-LUAD. (أ) مخطط كمان يقارن تعبير SHMT2 بين أنسجة الرئة الطبيعية (n = 59) وأورام LUAD (n = 542) باستخدام بيانات RNA-seq من TCGA-LUAD. (ب) منحنيات كابلان-ماير للبقاء الإجمالي للمرضى المقسمين عند القيمة الوسيطة لتعبير SHMT2. يظهر التعبير المرتفع لـ SHMT2 باللون الوردي، والتعبير المنخفض لـ SHMT2 باللون الأزرق. (ج) خريطة حرارية توضح الارتباطات بين تعبير SHMT2 والخصائص المرضية السريرية، بما في ذلك العمر، والجنس، والمرحلة المرضية الشاملة (المراحل I–IV)، ومرحلة الورم الأولي (T1–T4)، ومرحلة العقد اللمفاوية الإقليمية (N0–N2)، ومرحلة النقائل البعيدة (M0–M1). تشير العلامة * إلى وجود فروق ذات دلالة إحصائية بين مجموعات SHMT2-high و SHMT2-low (*p < 0.05؛ **p < 0.01؛ اختبار مربع كاي). (د) منحنيات ROC المعتمدة على الوقت لتقييم الأداء الإنذاري لتعبير SHMT2 في التنبؤ بالبقاء الإجمالي لمدة سنة واحدة و3 سنوات و5 سنوات في المرضى المصابين بـ LUAD. تظهر قيم AUC المقابلة في اللوحة. الاختصارات: SHMT2 = serine hydroxymethyltransferase 2؛ FPKM = fragments per kilobase of transcript per million mapped reads؛ ROC = receiver operating characteristic؛ AUC = area under the curve. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
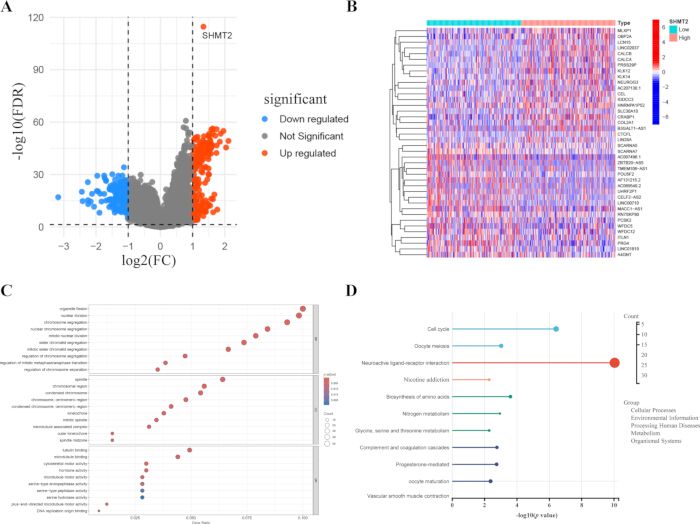
الشكل 3: يبرز التوصيف النسخي للأورام ذات التعبير العالي عن SHMT2 مقابل الأورام ذات التعبير المنخفض عن SHMT2 استقلاب SGOC/كربون واحد والبرامج التكاثرية. (A) مخطط بركاني يوضح الجينات ذات التعبير المتباين بين أورام LUAD ذات التعبير العالي عن SHMT2 والأورام ذات التعبير المنخفض عن SHMT2. تظهر الجينات ذات التعبير المرتفع باللون الأحمر، والجينات ذات التعبير المنخفض باللون الأزرق، والجينات غير ذات الدلالة الإحصائية باللون الرمادي. (B) خريطة حرارية لجينات DEGs ممثلة مع تجميع هرمي غير مُوجه. (C) تحليل إثراء الوجود الجيني (Gene Ontology) للجينات ذات التعبير المتباين. يشير حجم الفقاعة إلى عدد الجينات، ويمثل اللون قيمة p المعدلة، ويشير المحور x إلى نسبة الجينات. (D) تحليل إثراء مسار KEGG للجينات ذات التعبير المتباين. يمثل حجم النقطة عدد الجينات، ويشير المحور x إلى −log₁₀(p value). الاختصارات: SHMT2 = serine hydroxymethyltransferase 2؛ FDR = معدل الاكتشاف الخاطئ؛ FC = تغير الطي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
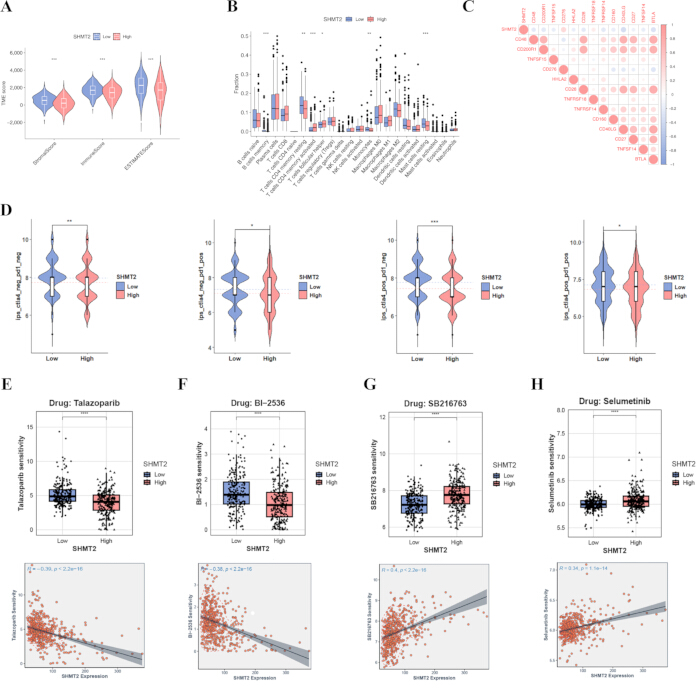
الشكل 4: يرتبط تعبير SHMT2 بسياق المناعة الورمية، والاستجابة المتوقعة للعلاج المناعي، والحساسية الدوائية. (A) مقارنة بين درجات TME، ودرجة ESTIMATE، ودرجة السداة (stromal score)، والدرجة المناعية، ونقاء الورم بين مجموعات التعبير المرتفع والمنخفض لـ SHMT2. (B) مقارنة ارتشاح الخلايا المناعية المقدر بواسطة CIBERSORT بين الأورام ذات التعبير المنخفض والمرتفع لـ SHMT2. (C) مصفوفة ارتباط Spearman بين SHMT2 والجينات المرتبطة بنقاط التفتيش المناعية. يعكس حجم الدائرة قوة الارتباط ويمثل اللون قيمة Spearman’s ρ (من الموجب إلى السالب). (D) مقارنات Immunophenoscore تحت أربعة إعدادات لحصار نقاط التفتيش المناعية (CTLA4-/PD-1-، CTLA4-/PD-1+، CTLA4+/PD-1-، CTLA4+/PD-1+)، مما يشير إلى انخفاض الفائدة المتوقعة في الأورام ذات التعبير المرتفع لـ SHMT2. (E) الحساسية المتوقعة لعقار Talazoparib في مجموعات التعبير المرتفع والمنخفض لـ SHMT2، موضحة كقيم IC₅₀ المقدرة (في الأعلى) والارتباط بين تعبير SHMT2 والحساسية الدوائية المتوقعة (في الأسفل). (F) الحساسية المتوقعة لعقار BI-2536 في مجموعات التعبير المرتفع والمنخفض لـ SHMT2، موضحة كقيم IC₅₀ المقدرة (في الأعلى) والارتباط بين تعبير SHMT2 والحساسية الدوائية المتوقعة (في الأسفل). (G) الحساسية المتوقعة لعقار S63845 في مجموعات التعبير المرتفع والمنخفض لـ SHMT2، موضحة كقيم IC₅₀ المقدرة (في الأعلى) والارتباط بين تعبير SHMT2 والحساسية الدوائية المتوقعة (في الأسفل). (H) الحساسية المتوقعة لعقار Selumetinib في مجموعات التعبير المرتفع والمنخفض لـ SHMT2، موضحة كقيم IC₅₀ المقدرة (في الأعلى) والارتباط بين تعبير SHMT2 والحساسية الدوائية المتوقعة (في الأسفل). الاختصارات: SHMT2 = serine hydroxymethyltransferase 2؛ TME = البيئة الدقيقة للورم؛ ESTIMATE = تقدير الخلايا السدائية والمناعية في أنسجة الأورام الخبيثة باستخدام بيانات التعبير؛ IC₅₀ = التركيز المثبط النصفي الأقصى. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
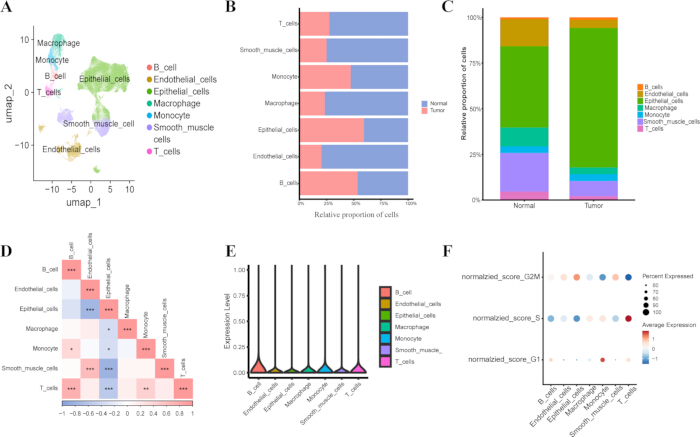
الشكل 5: المشهد أحادي الخلية يكشف عن تغير في التركيب الخلوي، وانحياز في تعبير SHMT2، وعدم تجانس في الدورة الخلوية في LUAD. (A) تصور UMAP لبيانات النسخ أحادية الخلية المتاحة علنًا من LUAD وأنسجة الرئة الطبيعية المجاورة، ملونة حسب نوع الخلية المحدد. (B) النسب النسبية لأنواع الخلايا في العينات الطبيعية والأورام موضحة كأشرطة أفقية مكدسة. (C) التركيب الخلوي العام موضح كأشرطة رأسية مكدسة. (D) الخريطة الحرارية لارتباط سبيرمان لنسب أنواع الخلايا؛ يشير اللون الأحمر إلى ارتباط إيجابي واللون الأزرق إلى ارتباط سلبي (*p < 0.05, **p < 0.01, ***p < 0.001). (E) مخططات الكمان لتعبير SHMT2 عبر أنواع الخلايا الرئيسية. (F) مخطط نقطي يوضح درجات الدورة الخلوية لمراحل G1 و S و G2/M عبر أنواع الخلايا المحددة؛ يشير حجم النقطة إلى نسبة الخلايا، ويشير اللون إلى متوسط درجة الدورة الخلوية. الاختصارات: UMAP = Uniform Manifold Approximation and Projection. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
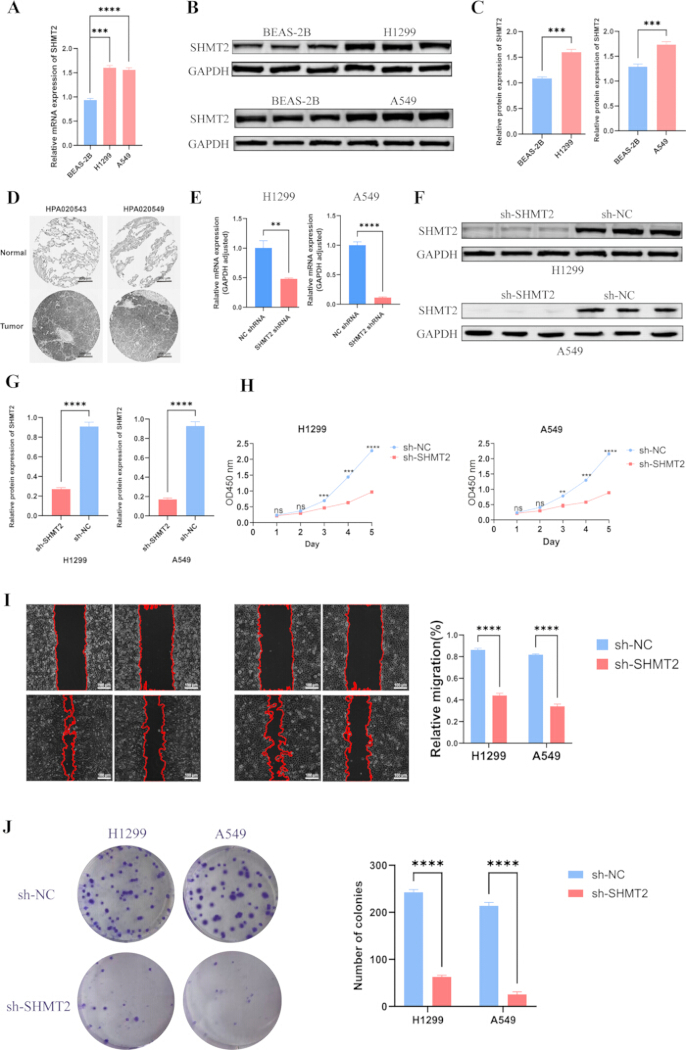
الشكل 6: التحقق التجريبي والنسيجي من تعبير SHMT2 والتأثيرات الوظيفية لتعطيل SHMT2 في خلايا LUAD. (A) تحليل RT-qPCR لتعبير mRNA لـ SHMT2 في الخلايا الظهارية الشعبية الطبيعية (BEAS-2B) وخطوط خلايا LUAD (H1299 و A549). (B) تحليل لطخة ويسترن لتعبير بروتين SHMT2 في خلايا BEAS-2B و H1299 و A549، مع استخدام GAPDH كضابط تحميل. (C) القياس الكمي للكثافة لتعبير بروتين SHMT2 المقنن إلى GAPDH في خلايا H1299 و A549 بالنسبة إلى BEAS-2B. (D) صور ممثلة للكيمياء النسيجية المناعية (IHC, x20) لـ SHMT2 في أنسجة الرئة الطبيعية وأنسجة LUAD من HPA باستخدام الأجسام المضادة HPA020543 و HPA020549. (E) التحقق بواسطة RT-qPCR من كفاءة تعطيل SHMT2 في خلايا H1299 و A549 المنقولة بـ sh-SHMT2 أو sh-NC. (F) تحليل لطخة ويسترن لتعبير بروتين SHMT2 بعد تعطيل SHMT2 في خلايا H1299 و A549. (G) القياس الكمي للكثافة لمستويات بروتين SHMT2 المقننة إلى GAPDH بعد تعطيل SHMT2. (H) مقاييس طقم عد الخلايا-8 (CCK-8) التي توضح تأثيرات تعطيل SHMT2 على تكاثر الخلايا في خلايا H1299 و A549. (I) مقاييس التئام الجروح (x200) التي توضح انخفاض القدرة على الهجرة بعد تعطيل SHMT2 في خلايا H1299 و A549؛ يوضح اللوح الأيمن القياس الكمي للهجرة النسبية. (J) مقاييس تكوين المستعمرات التي توضح انخفاض القدرة على تكوين المستعمرات بعد تعطيل SHMT2 في خلايا H1299 و A549؛ يوضح اللوح الأيمن القياس الكمي لأعداد المستعمرات. يتم عرض البيانات كمتوسط ± SD من ثلاث تجارب مستقلة على الأقل. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. الاختصارات: sh-NC = حمض نووي ريبوزي قصير دبوس الشكل كضابط سلبي؛ sh-SHMT2 = حمض نووي ريبوزي قصير دبوس الشكل يستهدف SHMT2. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: يرتبط تعبير SHMT2 عكسياً مع الحساسية المتوقعة للدواء في TCGA-LUAD. تم استنتاج الاستجابة الدوائية المتوقعة لعينات TCGA-LUAD ومقارنتها بين الأورام ذات التعبير المنخفض لـ SHMT2 والأورام ذات التعبير المرتفع لـ SHMT2 بناءً على نقطة الفصل المتوسطة. بالنسبة لكل مركب، يوضح اللوح العلوي الفروق بين المجموعات في درجة الاستجابة القائمة على IC50 (التركيز المثبط لنصف القيمة القصوى) (تشير القيم الأدنى إلى حساسية متوقعة أكبر)، ويوضح اللوح السفلي الارتباط بين التعبير المستمر لـ SHMT2 والحساسية المتوقعة مع خط انحدار خطي ملائم ونطاق ثقة 95%. استخدمت مقارنات المجموعات اختبار ويلكوكسون لمجموع الرتب ثنائي الجانب، وتم تسجيل الارتباطات كمعامل ارتباط سبيرمان r مع قيم p المقابلة (* p < 0.05, ** p < 0.01, *** p < 0.001). (A) Cytarabine. (B) GDC0810. (C) P22077. (D) Irinotecan. (E) AZD4547. (F) Palbociclib. (G) VE821. (H) I-BRD9. (I) Oxaliplatin.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 2: تصور بمخطط الحيد (Ridge plot) لتوزيعات درجات طور الدورة الخلوية عبر أنواع الخلايا بدقة الخلية الواحدة. تُظهر مخططات الحيد توزيعات درجات الدورة الخلوية المُطبعة عبر أنواع الخلايا الرئيسية، بما في ذلك الخلايا البائية (B cells)، والخلايا التائية (T cells)، والخلايا الظهارية، والبلاعم، والخلايا الوحيدة، والخلايا البطانية، وخلايا العضلات الملساء. (A) درجات طور G1. (B) درجات طور S. (C) درجات طور G2/M. تشير الاختلافات في شكل التوزيع وموضع الذروة إلى التباين في حالات التكاثر بين المجموعات الخلوية داخل البيئة المجهرية لسرطان الرئة الغدّي (LUAD).يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 1: الخصائص العيادية المرضية مجهولة الهوية لـ 23 مريضًا مصابًا بسرطان LUAD والمشمولين في تحليل الميتابولوميات للأنسجة المقترنة. تتضمن المتغيرات رقم المريض، والجنس، والعمر، ومرحلة الورم الأولي (T)، ومرحلة العقد الليمفاوية الإقليمية (N)، والمرحلة المرضية العامة. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 2: المستقلبات التفاضلية المحددة في سرطان الرئة الغدّي (LUAD) مقابل الأنسجة الطبيعية المجاورة المقترنة. يسرد الجدول رقم الدخول في قاعدة بيانات HMDB، واسم المستقلب، والصيغة الجزيئية، ودرجة VIP، و log₂(FC)، وقيمة p لكل مستقلب تفاضلي. الاختصارات: HMDB = قاعدة بيانات المستقلبات البشرية؛ VIP = أهمية المتغير في الإسقاط؛ FC = التغير في الطي. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 3: تسلسلات البادئات المستخدمة في تفاعل البوليميراز المتسلسل الكمي للنسخ العكسي (RT-qPCR). يدرج الجدول الجين المستهدف، واتجاه البادئة (أمامية أو عكسية)، وتسلسل البادئة (5′–3′) المستخدم لتحليل التعبير الجيني.يرجى النقر هنا لتحميل هذا الملف.
المناقشة
استخدمت هذه الدراسة إطار عمل تسلسلياً يتكون من الاكتشاف الميتابولومي، وتحديد أولويات الإنزيمات، والتفسير الترانسكريبتومي، وتقييم السياق المناعي، والتوطين على مستوى الخلية الواحدة، والتحقق الوظيفي للخلايا الورمية. تحدد التحليلات إعادة التشكيل الميتابولومي المتعلقة بالجلايسين وSGOC في LUAD، وتربط SHMT2 بالنتائج السلبية وانخفاض الفائدة المتوقعة من العلاج المناعي حسابياً. ويعد تحديد الأولويات هذا أقوى من الاعتماد على طبقة أوميكس واحدة، ولكنه لا يثبت وجود آلية مناعية مسببة.
يشكل SHMT2 نقطة دخول ميتوكوندرية رئيسية لتحويل السيرين إلى جلايسين وتوليد وحدات الكربون الواحد. وقد أظهر تحليل TCGA-LUAD زيادة تنظيم SHMT2 المرتبط بالأورام، وربط التعبير العالي بضعف معدلات البقاء على قيد الحياة والسمات السريرية المرضية السيئة. وتتفق هذه النتائج مع الدراسات التي تربط SHMT2 ببقاء الخلايا السرطانية وتكاثرها وغزوها ومقاومتها للعلاج20,21,22,23. كما ربطت أعمال إضافية SHMT2 بالتنظيم فوق الجيني، مما حفز تطوير مثبطات انتقائية لإنزيمات الكربون الواحد24,25. ووضعت تحليلات التعبير التفاضلي والإثراء SHMT2 ضمن برنامج SGOC ودورة خلوية منسقة بدلاً من كونه تغيراً معزولاً على مستوى الجين. لذا، فإن التوافق بين إثراء مسار المستقلبات والنسخ المرتبط بـ SHMT2 يعزز من تحديد أولويات المرشحين، بينما يظل ارتباطياً عبر طبقات الأوميكس.
يمكن صياغة الارتباط بين الأورام ذات التعبير العالي عن SHMT2 والسياق المناعي الضعيف من خلال ثلاثة مسارات غير حصرية. أولاً، قد يؤدي زيادة طلب الخلايا الورمية على السيرين، والجلايسين، ووحدات الكربون الواحد المرتبطة بالفولات، وركائز دورة الميثيونين إلى تغيير توزيع العناصر الغذائية وتقليل الكفاءة الأيضية للخلايا اللمفاوية المجاورة. ثانياً، قد يساهم إنتاج NADPH والجلوتاثيون والنيوكليوتيدات المدعوم بـ SHMT2 في تحسين بقاء الخلايا الورمية تحت وطأة الإجهاد التأكسدي والغذائي، مما يغير الإشارات المرتبطة بالإجهاد التي يتم إطلاقها في البيئة المجهرية. ثالثاً، يمكن أن يؤثر تدفق الكربون الواحد وتوافر S-adenosylmethionine على البرامج المعتمدة على الميثيلة في كل من الخلايا الخبيثة والمناعية26,27,28,29. هذه الآليات ممكنة بيولوجياً، إلا أن تحليلات الكتلة والخلية الواحدة الحالية لم تقم بقياس المستقلبات المحلية، أو إفراز السيتوكينات، أو وظيفة الخلايا المناعية بشكل مباشر. وبناءً على ذلك، يجب تفسير الفائدة المنخفضة المتوقعة حسب TIDE/TCIA في الأورام ذات التعبير العالي عن SHMT2 على أنها فرضية تربط نشاط SGOC بالضعف المناعي، وليس كدليل على أن SHMT2 يسبب مقاومة سريرية للعلاج المناعي.
توفر تحليلات الخلية المفردة دقة هيكلية إضافية. وأظهر تحليل بيانات تسلسل الحمض النووي الريبي للخلية المفردة (single-cell RNA-seq) المتاحة علنًا تغيرًا في التركيب الخلوي في أنسجة الأورام مقارنة بأنسجة الرئة الطبيعية، وارتباطًا إيجابيًا بين نسب الخلايا البائية (B-cell) والخلايا التائية (T-cell)، وهو ما يتفق مع المناعة التكيفية المنسقة30. كان تعبير SHMT2 غنيًا نسبيًا في الخلايا البائية، ولكنه ظل قابلًا للكشف في الخلايا الظهارية. تكتسب هذه الملاحظة أهميتها من أن الخلايا البائية والبنى اللمفاوية الثالثية يمكن أن تدعم تقديم المستضد، والاستجابات الموضعية للأجسام المضادة، والاستجابة لحصار نقاط التفتيش المناعية18,31,32,33؛ ومع ذلك، فإن ذلك لا يحدد النوع الفرعي المسؤول من الخلايا البائية أو يثبت ما إذا كان SHMT2 في الخلايا البائية مفيدًا أم ضارًا. كما تلاقت نتائج تحليل الكتلة والخلية المفردة حول نشاط الدورة الخلوية: حيث كانت مصطلحات الانقسام الميتوزي وفصل الكروموسومات غنية في الأورام ذات التعبير العالي لـ SHMT2، وتفاوتت درجات طور S وطور G2/M عبر أنواع الخلايا. ونظرًا لأن استقلاب الكربون الواحد في الميتوكوندريا يوفر سلائف النوكليوتيدات، فإن هذه النتائج تدعم وجود صلة محتملة بين نشاط SGOC المرتبط بـ SHMT2 والطلب التكاثري.
حدد Xi وآخرون برنامج TP63-RAC2 الذي عزز عملية التقام الخلايا الميتة (efferocytosis) في الخلايا البلعمية، وعزز الاستقطاب الشبيه بـ M2، وأعاد تشكيل سرطان المريء نحو كبت المناعة34، مما قدم مثالاً مباشراً على التواصل بين الورم والخلايا البلعمية. وربط Jiang وآخرون بروتين SATB2 في سرطان البنكرياس بتكاثر الخلايا الورمية وهجرتها، بالإضافة إلى تغيير سمية الخلايا التائية35، مما يوضح التأثيرات المتزامنة الجوهرية للورم والتأثيرات المناعية. وفي المقابل، أظهر Liu وآخرون أن TRIM29 دفع نمو الورم الأرومي الدبقي من خلال تحلل NEFL وتنشيط PI3K/AKT36؛ وهذه الآلية الجوهرية للورم بشكل أساسي تحذر من عزو كل ارتباط مناعي سلبي إلى إشارات السيتوكينات. كما حدد Zhai وآخرون تضخيماً في إشارات NF-κB بوساطة WDR54 في سرطان الخلايا الكبدية37، مما يسلط الضوء على عقدة التهابية مستجيبة للسيتوكينات يمكنها ربط السلوك الخبيث بإشارات البيئة الدقيقة. واستخدم Yin وآخرون الزرع المشترك وتجارب in vivo لإظهار أن PLAU تعاون مع التفاعلات المحيطية العصبية المرتبطة بعامل نمو الأعصاب في سرطان الرأس والعنق38، مما يثبت أن العوامل الذائبة وخارج الخلوية يمكن أن تنظم التواصل المتبادل في السدى غير المناعي. وأخيراً، لخص Liu وآخرون الأدوار المزدوجة والاعتمادية على السياق لإشارات JAK/STAT التي تحفزها السيتوكينات: حيث يمكن أن تؤدي إشارات IL-6/STAT3 والـ IFN المستمرة إلى تعزيز تعبير PD-L1، وحالات النخاع الكابتة، وإنهاك الخلايا التائية، بينما تكون الإشارات الموقوتة بشكل مناسب مطلوبة أيضاً لتقديم المستضد والمناعة المضادة للأورام39. وبشكل جماعي، توفر هذه الدراسات مبرراً بيولوجياً لاختبار ما إذا كانت إعادة برمجة SGOC تعدل حالات السيتوكينات أو الخلايا البلعمية أو السدى أو الخلايا اللمفاوية، ولكن لا يوجد أي منها يثبت وجود دائرة سيتوكينات خاصة بـ SHMT2 في LUAD. وبناءً على ذلك، تحدد نتائج TIDE/TCIA الحالية اتجاهاً قابلاً للاختبار للعمل الميكانيكي.
يوفر التنظيم التأكسدي الاختزالي سياقاً ميكانيكياً ذا صلة وثيقة. فقد أثبت DeNicola وزملاؤه في سرطان الرئة غير صغير الخلايا أن NRF2 ينظم PHGDH وPSAT1 وSHMT2 من خلال ATF4، مما يدعم إنتاج الجلوتاثيون والنوكليوتيدات ويربط هذا البرنامج بسوء الإنذار40. وفي وقت لاحق، أظهر Zhang وزملاؤه أن خلايا سرطان المريء الغدي التي نجت من تثبيط HER2 قد راكمت NRF2؛ حيث أدى تثبيط NRF2 إلى زيادة السمية الخلوية لعقار lapatinib، بينما أدى التعبير المستمر عن NRF2 إلى تقليل الحساسية وخلق اعتماد على NRF241. لم تختبر الدراسة الأخيرة تثبيط SHMT2 بشكل مباشر، ولكن هذه النتائج مجتمعة تشير إلى أن SHMT2 قد يعمل كجزء من برنامج تأكسدي اختزالي وتخليقي يدعمه NRF2. وفي حالات LUAD، يجب اختبار هذه الفرضية عن طريق تصنيف حالة KEAP1/NFE2L2 وتحديد ما إذا كان اضطراب SHMT2 يزيد بشكل انتقائي من أنواع الأكسجين التفاعلية أو يستعيد الحساسية للعلاج في النماذج النشطة لـ NRF2.
بالمقارنة مع التحليلات المقتصرة على الميتابولوميات أو الترانسكريبتوميات فقط، يربط سير العمل المتكامل إشارة الميتابوليت على مستوى النسيج بالتعبير الجيني ذي الصلة بالمسار، وتوزيع أنواع الخلايا، والنمط الظاهري للاضطراب. يعمل هذا التصميم على تحسين تحديد أولويات المرشحين ويمكن توسيع نطاقه من خلال استبدال المجموعات الترانسكريبتومية العامة أو مجموعات الخلايا المفردة، إلا أن كل طبقة تقدم مصادر متميزة من التباين. يعد التجميد السريع والموحد للأنسجة أمراً بالغ الأهمية لأن التأخير بعد الاستئصال يمكن أن يغير وفرة الجزيئات الصغيرة. كما ينبغي أن يؤدي الانحراف في مطياف الكتلة، أو عدم استقرار إشارة الإيونات الكلية، أو ضعف أداء التبديل إلى إعادة المعايرة، ومراجعة جودة الإشارة، وإعادة التحليل قبل تفسير الميتابوليتات. تتطلب التحليلات الكتلية تجميعاً وعتبات تصفية محددة مسبقاً، بينما يجب اختبار الاستنتاجات المستخلصة من الخلايا المفردة عبر إعدادات معقولة لمراقبة الجودة ودقة العنقودية. يتطلب التحقق In vitro مطابقة ممر الخلايا، وتلاقيّاً قابلاً للمقارنة، وعرض جرح موحداً، وتأكيد تثبيط SHMT2 قبل مقايسات النمط الظاهري. تعمل نقاط التحقق هذه على تحسين القابلية للتكرار ولكنها لا تلغي التأثيرات الخاصة بالمجموعة أو المنصة أو النموذج.
هناك عدة قيود تحد من عملية التفسير. فقد كانت مجموعة بيانات ميتابولوميات الأنسجة متواضعة، وتتطلب الميتابوليتات المحددة تحققاً كمياً مستهدفاً. كما تم استنتاج الفائدة من العلاج المناعي والحساسية الدوائية من نماذج قائمة على الترانسكريبتوم بدلاً من قياسها في مجموعة عولجت بمثبطات نقاط التفتيش المناعية (ICI) أو من خلال تجربة فارماكولوجية. وتشير مجموعة بيانات الخلية الواحدة إلى تعبير SHMT2 منحاز للخلايا البائية، لكنها لا تحدد النوع الفرعي للخلايا البائية، أو التنظيم المكاني، أو الوظيفة المناعية المعتمدة على SHMT2. أما التجارب in vitro فقد أثبتت نمطاً ظاهرياً لنمو الخلايا الورمية وهجرتها بعد التثبيط الجيني، لكنها لم تثبت وجود آلية مناعية بوساطة السيتوكينات أو السلامة العلاجية. لذا، ينبغي أن تعمل الدراسات المستقبلية على تصنيف الأورام حسب حالة KEAP1/NFE2L2، وقياس تدفق SGOC وإفراز السيتوكينات، والجمع بين اضطراب SHMT2 والاستزراع المشترك للمناعة، والتوصيف المكاني، ودراسات الانتقائية الفارماكولوجية، والتحقق in vivo.
باختصار، يرتبط SHMT2 بإعادة التشكيل الأيضي لـ SGOC، والتنبؤات المرضية غير المواتية، وبرامج النسخ التكاثرية، وسياق ورمي ذي ميزة مناعية منخفضة، واستجابة أقل للعلاج المناعي وفقاً للتوقعات الحسابية في حالات LUAD. وقد أشار تحليل الخلية الواحدة إلى إثراء نسبي في تعبير SHMT2 في مجموعات الخلايا البائية، بينما أدى التثبيط الجيني in vitro إلى تقليل التكاثر والهجرة والنمو المستنسخ في خلايا LUAD. وتدعم هذه النتائج اعتبار SHMT2 مؤشراً حيوياً مرشحاً لمزيد من التحقق، كما توفر إطاراً قابلاً للاختبار لدراسة التفاعلات الأيضية المناعية.
الإفصاحات
يعلن المؤلفون عن عدم وجود تضارب في المصالح.
شكر وتقدير
يتوجه المؤلفون بالشكر للمرضى وعائلاتهم لمشاركتهم في هذه الدراسة. كما يقر المؤلفون بفضل المساهمين في قواعد بيانات TCGA وGEO وHPA لإتاحة بياناتهم للعامة. تم تمويل هذا البحث من قبل برنامج البحث والتطوير الرئيسي في مقاطعة Jiangxi (منحة رقم 20223BBG71009) والمؤسسة الوطنية للعلوم الطبيعية في الصين (منح رقم 81860379 و82160410).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| خلايا A549 | CCL-185 | ATCC | |
| جسم مضاد لـ GAPDH | M1310-2 | Huaan Biotechnology | |
| جسم مضاد لـ SHMT2 | D197021 | Sangon Biotech | |
| خلايا BEAS-2B | CRL-9609 | ATCC | |
| طقم عد الخلايا-8 (CCK-8) | K1018 | APExBIO | |
| قاعدة البيانات: TCGA / GDC | تاريخ الوصول 18-12-2025 | المعهد الوطني للسرطان (NCI) | |
| قاعدة البيانات: GEO | تاريخ الوصول: 20-12-2025 | المركز الوطني لمعلومات التقانة الحيوية (NCBI) | |
| قاعدة البيانات: HMDB | تاريخ الوصول: 12-12-2025 | قاعدة بيانات الأيض البشري | |
| قاعدة البيانات: KEGG | تم الوصول إليه في 2025-12-11 | مختبرات كانيهيسا (Kanehisa Laboratories) | |
| قاعدة البيانات: أطلس البروتين البشري (Human Protein Atlas) | أطلس البروتين | ||
| قاعدة البيانات: GDSC | إصدار 2023-12 | معهد سانجر (Sanger Institute) | |
| قاعدة البيانات: Ensembl | 2025-12 | EMBL-EBI | |
| قاعدة البيانات: TCIA | تاريخ الوصول: 10-12-2025 | أطلس المناعة السرطانية | |
| خلايا H1299 (NCI-H1299) | CRL-5803 | ATCC | |
| جسم مضاد ثانوي مقترن بإنزيم HRP | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| نظام LightCycler 480 | 5015278001 | Roche | |
| حليب خالي الدسم | كاشف مختبري شائع | BD (أو كما استُخدم) | |
| غشاء PVDF، 0.22 µm | GVHP00010 (أو كاشف مختبري شائع) | MilliporeSigma (أو كما استُخدمت) | |
| حزمة R: pRoloc | 1.40.0 | بيوكوندوكتور (Bioconductor) | |
| حزمة R: TCGAbiolinks | 2.26.0 | Bioconductor | |
| حزمة R: survival | 3.4-0 | شبكة أرشيف R الشاملة (CRAN) | |
| حزمة R: survminer | 0.4.9 | شبكة مستودع R الشاملة (CRAN) | |
| حزمة R: timeROC | 1.0.4 | CRAN | |
| حزمة R: DESeq2 | 1.38.1 | Bioconductor | |
| حزمة R: ggplot2 | 3.4.4 | CRAN | |
| حزمة R: pheatmap | 1.0.12 | CRAN | |
| حزمة R: clusterProfiler | 4.6.2 | Bioconductor | |
| حزمة R: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| حزمة R: estimate | 1.0.13 | Bioconductor / GitHub | |
| حزمة R: CIBERSORT | 1 | (نص برمجي مستقل بلغة R) | |
| حزمة R: corrplot | 0.92 | شبكة أرشيف R الشاملة (CRAN) | |
| حزمة R: TIDE | 0.3.0 | حزمة R | |
| حزمة R: oncoPredict | 1.1.1 | CRAN / GitHub | |
| حزمة R: GEOquery | 2.66.0 | Bioconductor | |
| حزمة R: Seurat | 4.3.0 | CRAN | |
| حزمة R: SingleR | 1.10.0 | بيوكوندوكتور (Bioconductor) | |
| حزمة لغة R: scran | 1.26.0 | Bioconductor | |
| مزيج SYBR Green qPCR الرئيسي (العام) | HY-K0501A | MedChemExpress (MCE) | |
| كاشف TRIzol العام | DP424 | Tiangen Biotech |
المراجع
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.