وظفت هذه الدراسة علم الصيدلة الشبكي ومحاكاة الديناميكا الجزيئية لاستقصاء الآليات والمسارات الجزيئية لمادة plumbagin في علاج سرطان البروستاتا. وتظهر النتائج أن plumbagin قد يرتبط بشكل مستقر بكل من AKT1، وESR1، وBCL2، وEGFR، وTNF، وMAPK3، وHSP90AA1، وSRC، وPPARG.
مقالة بحثية
التحليل الحسابي لمادة البلومباجين في سرطان البروستاتا باستخدام علم الصيدلة الشبكي ومحاكاة الديناميكا الجزيئية
29 مشاهدة
⸱
سبتمبر 11, 2026
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يُعد سرطان البروستاتا مساهماً رئيساً في معدلات الوفيات المرتبطة بالسرطان بين الرجال. وبما أن العديد من المرضى لا يتم تشخيصهم إلا بعد تطور المرض إلى مرحلة متقدمة موضعياً أو مرحلة انتقالية، فإن العلاج الشفائي غالباً ما يصبح غير ممكن. وفي الدراسة الحالية، طبقنا نهجاً حاسوبياً متكاملاً يجمع بين علم الصيدلة الشبكي، والرسو الجزيئي، ومحاكاة الديناميكيات الجزيئية لاستكشاف الآليات الجزيئية المحتملة التي تكمن وراء التأثيرات العلاجية لمادة البلامباجين (plumbagin) في سرطان البروستاتا. تم تحديد الأهداف العلاجية المحتملة من خلال تحليل متكامل لقواعد البيانات، تلاه بناء شبكة تفاعل البروتينات-البروتينات، وتحليل الإثراء الوظيفي، والرسو الجزيئي، ومحاكاة الديناميكيات الجزيئية لتقييم استقرار التفاعلات بين البروتين والرابط. وقد كشفت تحليلاتنا الحاسوبية أن البلامباجين قد يشكل تفاعلات مستقرة مع أهداف مركزية متعددة، بما في ذلك كيناز السيرين/الثريونين AKT 1 (AKT1)، ومستقبل الإستروجين 1 (مستقبل الإستروجين ألفا (ESR1)، ومنظم موت الخلايا المبرمج BCL2 (BCL2)، ومستقبل عامل نمو البشرة مستقبل عامل نمو epidermal (EGFR)، عامل نخر الورم عامل نخر الورم (TNF)، كيناز البروتين المنشط بالميتوجين 3 (MAPK3)، بروتين الصدمة الحرارية 90 ألف، عائلة الفئة A، العضو 1 (HSP90AA1)، الجين الورمي الأولي SRC, تيروزين كيناز غير مستقبلاتي (SRC)، ومستقبل غاما المنشط بمكاثر البيروكسيسوم (PPARG), مما يشير إلى قدرته على تعديل المسارات الرئيسية المشاركة في تطور سرطان البروستاتا. وهذه في الحاسوب توفر هذه النتائج رؤى جديدة حول الآليات الجزيئية المحتملة لمادة plumbagin وتقدم مبرراً للتحقق التجريبي في المستقبل. ومع ذلك، فإن المزيد من في المختبر و في الجسم الحي ثمة حاجة إلى إجراء دراسات لتأكيد نشاطه الوظيفي وفعاليته العلاجية.
المقدمة
يُعد سرطان البروستاتا مرضاً غير متجانس، حيث تتراوح مظاهره السريرية من آفات يتم اكتشافها عبر الفحص الدوري دون ظهور أعراض وقد لا تتطور أبداً، إلى أورام خبيثة عدوانية، وهو سبب رئيسي للمراضة والوفيات في جميع أنحاء العالم1,2. ومن المتوقع عالمياً أن يتضاعف عدد الحالات الجديدة من سرطان البروستاتا من 1.4 مليون حالة في عام 2020 إلى 2.9 مليون حالة في عام 2040، بينما يُتوقع أن يرتفع عدد الوفيات السنوي من 375,0 حالة في عام 2020 إلى ما يقرب من 70,0 حالة في عام 20403. يُشخص سرطان البروستاتا في البداية كأورام خبيثة تعتمد على الأندروجين، ويكون قابلاً للعلاج باستخدام العلاج بحرمان الأندروجين. ومع ذلك، وبالرغم من الاستجابة الأولية الفعالة، يتطور المرض حتماً إلى شكل مستقل عن الأندروجين. ويكون المرضى الذين يعانون من سرطان البروستاتا المقاوم للهرمونات عرضة لخطر متزايد بشكل ملحوظ للإصابة بنقائل عظمية، مما يؤدي إلى آفات هيكلية ذات أهمية سريرية4,5,6,7. علاوة على ذلك، بينما يمكن علاج سرطان البروستاتا في مراحله المبكرة عن طريق الجراحة أو العلاج الإشعاعي، فإن العديد من المرضى يعانون بالفعل من مرض متقدم موضعياً أو منتشر عند التشخيص، وهو ما لا يوجد له علاج شافٍ حالياً8,9. ولذلك، هناك حاجة ملحة لتطوير عوامل فعالة وعالية الانتقائية للوقاية من نقائل سرطان البروستاتا و/أو علاجها.
لقد ثبت أن مجموعة متنوعة من المستخلصات الطبيعية، مثل الليكوبين، ومنتجات الصويا، والشاي الأخضر، وفينولات الرمان، والأبيجينين، بالإضافة إلى فيتاميني D و E، تمنع بشكل فعال تطور سرطان البروستاتا10,1,12,13. ويمتلك البلومباجين (PLB)، وهو مركب نافثوكينون طبيعي يتواجد على نطاق واسع في الطبيعة ومكون رئيسي في نبات Plumbago zeylanica، خصائص مضادة للعدوى14، ومضادة للالتهابات15، ومضادة لتصلب الشرايين16، ومضادة للأورام17,18. وقد أظهرت الدراسات أن PLB يمارس تأثيرات مضادة للأورام في أنواع مختلفة من الخلايا السرطانية، بما في ذلك سرطان الثدي، وسرطان الرئة غير صغير الخلايا، وسرطان الكبد، وسرطان البنكرياس، وسرطان القولون والمستقيم، وسرطان المبيض، وسرطان البروستاتا، والدبقيات، والورم الأرومي الشبكي19,20,21. كما أظهرت التجارب In vitro أن PLB يثبط تكاثر خلايا سرطان البروستاتا2,23. ويقوم PLB أيضاً بتنظيم تعبير البروتينات الدقيقة، مما يؤثر بدوره على سلوكيات خلوية متعددة في خلايا سرطان البروستاتا، بما في ذلك التحكم في الدورة الخلوية، والموت الخلوي المبرمج، والالتهام الذاتي، والتحول الظهاري المتوسط24,25. بالإضافة إلى ذلك، يؤخر PLB نمو الخلايا السرطانية المستقلة عن الأندروجين في نماذج الفئران التي زُرعت فيها طعوم غريبة تحت الجلد2,26.
على الرغم من أن العديد من الدراسات قد أظهرت أن PLB يثبط تكاثر وغزو خلايا سرطان البروستاتا، إلا أنه لا يوجد حالياً استقصاء منهجي للأهداف والمسارات التي يؤثر من خلالها PLB على هذه الخلايا. وباستخدام علم الصيدلة الشبكي، والارتباط الجزيئي، ومحاكاة الديناميكا الجزيئية، سعت هذه الدراسة إلى توضيح الأهداف والمسارات المحتملة التي تكمن وراء التأثيرات العلاجية لـ PLB في سرطان البروستاتا.
البروتوكول
التنبؤ بالأهداف المحتملة لـ PLB وفحصها
تم الحصول على معلومات البنية الكيميائية لـ PLB من قاعدة بيانات PubChem (https://pubchem.ncbi.nlm.nih.gov/). وتم التنبؤ بالأهداف الجزيئية لـ PLB بناءً على التشابه ثنائي الأبعاد وثلاثي الأبعاد القائم على الرابط (ligand-based) باستخدام قواعد بيانات SwissTarget (https://swisstargetprediction.ch/index.php)، وSEA (https://sea.bkslab.org/)، وTargetNet (http://targetnet.scbdd.com/calcnet/index/)، وPharmMapper (https://www.lilab-ecust.cn/pharmmapper/index.html)، وقاعدة بيانات السموم الجينية المقارنة (CTD, https://ctdbase.org/)، ومنصة تحليل وقاعدة بيانات علم الصيدلة النظمي للطب الصيني التقليدي (TCMSP, https://www.tcmsp-e.com/index.php)، وHERB (http://herb.ac.cn/). ولضمان موثوقية البيانات وقابليتها للتكرار، تم تطبيق عتبات تصفية خاصة بكل قاعدة بيانات على النحو التالي: احتفظت TCMSP بالأهداف التي تبلغ توافرها الحيوي الفموي (OB) ≥ 30% ومستوى تشابهها مع الأدوية (DL) ≥ 0.18؛ واحتفظت SwissTargetPrediction بالمدخلات التي تبلغ احتمالية التنبؤ بها ≥ 0.5؛ واختارت PharmMapper الأهداف التي تبلغ درجة الملاءمة المعيارية لها ≥ 4.0؛ وشملت SEA فقط الأهداف ذات القيمة E-value < 0.01 باعتبارها مثرية بشكل ملحوظ؛ واحتفظت TargetNet بالأهداف التي تبلغ احتمالية التنبؤ بها > 0.5؛ وشملت CTD فقط الأهداف ذات الأدلة المنسقة (المستنتجة من التفاعلات بين المواد الكيميائية والجينات) وبدرجة تفاعل > 0.3؛ واحتفظت HERB بالأهداف ذات الدرجة المدعومة بالأدبيات العلمية ≥ 0.4. وتم توحيد جميع معرفات البروتينات المسترجعة من قواعد البيانات المذكورة أعلاه إلى رموز جينات HGNC البشرية الرسمية باستخدام قاعدة بيانات UniProt (https://www.uniprot.org/)، مع قصر الأنواع على Homo sapiens. وبعد إزالة المدخلات المكررة من جميع المصادر، تم الحصول على إجمالي 50 هدف فريد مرتبط بـ PLB للتحليل اللاحق.
استرجاع الجينات المرتبطة بسرطان البروستاتا
تم الحصول على الجينات المرتبطة بسرطان البروستاتا من GeneCards (https://www.GeneCardss.org/)، وDrugBank (https://go.drugbank.com/)، وCTD، وHERB. وطُبقت معايير اشتمال خاصة بكل قاعدة بيانات لضمان موثوقية البيانات؛ حيث احتفظت GeneCardss بالجينات التي حصلت على درجة صلة ≥ 0.5، لأن هذا الحد يستوعب الجينات ذات الأدلة المتوسطة إلى القوية التي تربطها بالمرض محل البحث. وشملت DrugBank فقط المدخلات ذات الأدلة التجريبية (مثل الأدوية المعتمدة من FDA أو الأدوية قيد البحث لعلاج سرطان البروستاتا) واستبعدت التفاعلات المتوقعة حاسوبياً أو النظرية. أما CTD فقد احتفظت فقط بالسجلات ذات مستويات الأدلة المصنفة كـ ""marker"" أو ""mechanism"" بناءً على تفاعلات الكيماويات والجينات والأمراض المنسقة. وشملت HERB الأهداف ذات درجة الثقة المدعومة أدبياً ≥ 0.4 لضمان وجود أدلة تجريبية أو أدلة مستخرجة من النصوص كافية. وتم توحيد جميع رموز الجينات وفقاً لتسميات HGNC عبر قاعدة بيانات UniProt (https://www.uniprot.org/)، مع قصر الأنواع على Homo sapiens، كما تمت إزالة التكرارات، مما أسفر عن 1,19 هدفاً فريداً مرتبطاً بسرطان البروستاتا للتحليل اللاحق.
تحديد الأهداف المتداخلة وتصحيح تعليقات التضارب
تَمّ تقاطع الـ 50 هدف لـ PLB والـ 1,19 هدف لسرطان البروستاتا باستخدام رموز HGNC الموحدة في برنامج Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html)، مما أسفر عن 151 هدفاً مرشحاً متداخلاً. ولحل تعارضات التوصيف بين قواعد البيانات، تم تنفيذ مسار تصحيح مكون من ثلاث خطوات: (1) توحيد التناقضات في الأسماء المستعارة للجينات عبر أداة تعيين معرفات UniProt؛ (2) استبعاد الجينات المكررة المتوازية (paralogous) باستخدام برنامج CD‑HIT مع حد تشابه في التسلسل > 0.4؛ (3) الاحتفاظ بالتوصيفات الوظيفية المتعارضة فقط إذا كانت مدعومة بقاعدتي بيانات مستقلتين على الأقل، بينما تم استبعاد الأوصاف المتعارضة الفريدة الواردة من مصدر واحد.
بناء الشبكة وتحديد المراكز
تم بناء شبكة تفاعلات البروتين-بروتين (PPI) عن طريق إدخال الأهداف المتداخلة في قاعدة بيانات STRING (الإصدار 12.0، https://cn.string-db.org/)، مع قصر البحث على Homo sapiens. وقد تم الاحتفاظ فقط بالتفاعلات التي سجلت درجة ثقة مجمعة ≥ 0.70 لضمان الموثوقية العالية، واستُبعدت من الشبكة جميع العقد التي تفتقر إلى أي اتصالات. تمت معاينة شبكة PPI المبنية وتحليلها طوبولوجياً باستخدام برنامج Cytoscape (الإصدار 3.10.2)، وبعد ذلك تم تحديد الجينات المركزية (hub genes) باستخدام إضافة cytoHubba، مع اعتماد خوارزمية MCC (Maximal Clique Centrality) كخوارزمية تصنيف أساسية، ومقياس الدرجة (Degree) كمعيار تكميلي للتحقق المتقاطع.
تحليل الإثراء الوظيفي
تم إجراء تحليل التوصيف الوظيفي للأنطولوجيا الجينية (GO) وتحليلات إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG) للجينات ذات التعبير التفاضلي باستخدام منصة التحليل المعلوماتي الحيوي عبر الإنترنت (https://www.bioinformatics.com.cn، تم الدخول إليها آخر مرة في 4 مايو 2026). تعتمد المنصة اختبار فيشر الدقيق لحساب قيم P الخام، واستُخدمت طريقة بنجاميني-هوتشبرج (BH) لتصحيح الاختبارات المتعددة للتحكم في معدل الاكتشاف الكاذب (FDR). واعتُبرت مصطلحات GO (العملية البيولوجية، والمكون الخلوي، والوظيفة الجزيئية) ومسارات KEGG التي كانت قيمة FDR لها < 0.05 ذات إثراء معنوي.
الرسو الجزيئي
تَم الحصول على التراكيب البلورية لبروتينات الهدف المختارة، والتي تمثل التشكيلات النشطة، من بنك بيانات البروتينات RCSB (https://www.rcsb.org/). أُجري تحضير البروتين باستخدام برنامج Discovery Studio، وشمل ذلك إزالة جزيئات الماء والذرات غير المتجانسة، وحذف السلاسل المكررة، وإصلاح البقايا المفقودة، وإضافة ذرات الهيدروجين عند pH 7.4، وتعيين شحنات Gasteiger، وتقليل الطاقة إلى الحد الأدنى. تم تحديد جيب الارتباط بناءً على إحداثيات الربيطة المبلورة المشتركة، باستخدام شبكة تشمل جميع بقايا ارتباط الركيزة الحرجة. نُفذ الإرساء الجزيئي لـ PLB باستخدام خادم SwissDock الإلكتروني (http://www.swissdock.ch/) عبر وحدة Attracting Cavities. حُسبت طاقات الارتباط الحرة لتقييم الألفة، واختير التشكيل ذو الطاقة الأدنى لكل هدف كوضعية الإرساء النهائية. كما تم تصور نتائج محاكاة الإرساء الجزيئي للتحقق من صحتها.
محاكاة الديناميات الجزيئية
أُجريت محاكاة الديناميكا الجزيئية (MD) باستخدام برنامج GROMACS 202.2. واستُخدم حقل القوة Amber14SB لوصف البروتين، مع إذابة النظام في ماء TIP3P. تم توليد معاملات Plumbagin، بما في ذلك الشحنات الجزئية AM1-BCC وأنواع الذرات GAFF2، باستخدام Antechamber، متبوعة بتحويل الطوبولوجيا بواسطة ACPYPE وتعيين معاملات الأيونات Joung-Cheatham. وُضع كل معقد بروتين-ربيطة في صندوق محاكاة ثنائي عشر وجهًا مقتطعًا بمسافة دنيا بين البروتين والصندوق تبلغ 1.2 nm، وأُذيب بجزيئات ماء TIP3P، وتم تعادُل الشحنات بإضافة 0.15 M Na⁺/Cl⁻. وبعد تقليل الطاقة باستخدام خوارزمية الانحدار الأكثر حدة (Fmax < 1,0 kJ·mol⁻1·nm⁻1)، خضع النظام لعمليتي توازن متتاليتين NVT و NPT لمدة 200 ps لكل منهما عند 298 K. ثم أُجريت محاكاة الإنتاج لمدة 20 ns تحت ظروف NPT بخطوة زمنية للتكامل تبلغ 2 fs باستخدام مخطط قطع Verlet. حُسبت التفاعلات الكهروستاتيكية بعيدة المدى بطريقة particle mesh Ewald (PME)، بينما اعتمدت كل من التفاعلات الكهروستاتيكية وتفاعلات van der Waals مسافة قطع تبلغ 1.2 nm. واستُخدمت خوارزمية LINCS لتقييد الروابط التي تحتوي على الهيدروجين. حوفظ على درجة الحرارة عند 298 K باستخدام منظم الحرارة Nosé-Hoover والضغط عند 1 bar باستخدام منظم الضغط Parrinello-Rahman. حُفظت الإحداثيات كل 10 ps للتحليلات اللاحقة. وأُجري تحليل المسار والتصور باستخدام أدوات GROMACS و VMD و PyMOL، بينما نُفذت حسابات طاقة الارتباط الحرة MM-PBSA باستخدام gmx_MMPBSA حيثما كان ذلك مناسبًا.
تقييم التوازن لمسارات الديناميكا الجزيئية وبروتوكول أخذ عينات الطاقة الحرة بطريقة MM-PBSA
بالنسبة لكل معقد بروتين–plumbagin، تم إجراء محاكاة ديناميكا جزيئية إنتاجية شاملة للذرات لمدة 200 ns باستخدام برنامج GROMACS. تم تحديد النقطة الزمنية 10 ns كحد للتوازن: حيث خُص الجزء من 0–10 ns كمرحلة استرخاء تشكلي، خضع خلالها الهيكل البروتيني وجيب ارتباط الليجاند لتعديلات تشكلية مستمرة؛ بينما تم تحديد الجزء من 10–20 ns كمنطقة استقرار ديناميكي حراري، وهو ما ثبت من خلال غياب الانزياح أحادي الاتجاه في كل من RMSD، ونصف قطر الدوران (Rg)، وRMSF لكل بقية، وSASA المدفونة لليجاند، والروابط الهيدروجينية بين الجزيئات، وطاقات التفاعل بين الليجاند والمستقبل، والتي أظهرت فقط تقلبات طفيفة في الحالة المستقرة. تم حساب جميع المعاملات الحركية الكمية وطاقات الارتباط الحرة MM/PBSA حصرياً من مرحلة التوازن 10–20 ns، والتي استُخلصت منها الإطارات بانتظام كل 10 ps، مما نتج عنه 1,0 لقطة توازن لكل نظام كمدخلات لبرنامج gmx_MMPBSA. تم استبعاد أول 10 ns من مسارات الاسترخاء للقضاء على التداخل الناتج عن الانزياح التشكلي في حسابات الطاقة الحرة.
التحليل الإنذاري للجينات المستهدفة في سرطان البروستاتا
أُجريت تحليلات التنبؤ باستخدام مجموعات بيانات سرطان البروستاتا من أطلس جينوم السرطان (TCGA). تم الحصول على بيانات تسلسل الحمض النووي الريبي (STAR-counts) والمعلومات السريرية المقابلة لها من بوابة Genomic Data Commons (https://portal.gdc.cancer.gov). حُوّلت أعداد التعبير الجيني إلى عدد النسخ لكل مليون (TPM) وتم تطبيعها باستخدام log2(TPM + 1). وبعد استبعاد العينات ذات المعلومات السريرية غير المكتملة، شمل التحليل 498 حالة. استُخدم متوسط مستوى التعبير لكل جين لتقسيم المرضى إلى مجموعات ذات تعبير مرتفع ومنخفض. أُجري تحليل البقاء على قيد الحياة باستخدام منهج كابلان-ماير (Kaplan-Meier) مع اختبار رتبة السجلات (log-rank test) وانحدار كوكس للمخاطر النسبية أحادي المتغير لتقييم البقاء الإجمالي (OS) لـ SRC والبقاء الخالي من تطور المرض (PFS) لـ MAPK3، مع تسجيل نسب المخاطر (HRs) وفواصل الثقة 95% (CIs). كما تم تقييم الأداء التنبؤي بشكل أكبر من خلال إنشاء منحنيات خصائص تشغيل المستقبل (ROC) المعتمدة على الوقت عند 1 و3 و5 سنوات. أُجريت التحليلات الإحصائية باستخدام برنامج R الإصدار 4.0.3، واعتُبرت القيمة P < 0.05 ذات دلالة إحصائية.
النتائج
نتائج تنبؤ أهداف PLB وسرطان البروستاتا
رقم التعريف الكيميائي (CID) لمركب PLB في قاعدة بيانات PubChem هو 10205، واسمه وفقاً للاتحاد الدولي للكيمياء البحتة والتطبيقية (IUPAC): 5-hydroxy-2-methylnaphthalene-1,4-dione، وصيغته المبتسمة (SMILES): CC1=CC(=O)C2=C(C1=O)C=CC=C2O، ومفتاح InChIKey: VCMMXZQDRFWYSE-UHFFFAOYSA-N، وصيغة InChI: InChI=1S/C11H8O3/c1-6-5-9(13)10-7(11(6)14)3-2-4-8(10)12/h2-5,12H,1H3، ووزنه الجزيئي: 188.18، وصيغته الجزيئية: C11H8O3، ورقم تسجيل خدمة ملخصات الكيمياء (CAS): 481-42-5. وبعد إزالة المكررات، توقعت هذه الدراسة 500 هدف محتمل لمركب PLB باستخدام قواعد بيانات SwissTarget وSEA وTargetNet وPharmMapper وCTD وTCMSP وHERB (الجدول التكميلي S1). وبعد إزالة التكرارات، تم التنبؤ بـ 1,199 هدفاً محتملاً لسرطان البروستاتا باستخدام قواعد بيانات GeneCards وDrugBank وTCMSP وCTD وHERB (الجدول التكميلي S2).
آلية عمل PLB في سرطان البروستاتا كما تم التنبؤ بها بواسطة علم الصيدلة الشبكي
تم إنشاء مخطط فين لتحليل تقاطع الأهداف، وهو ما كشف عن 151 هدفاً متداخلًا (الشكل 1). وبناءً على ذلك، تم إنشاء شبكة تفاعل البروتين-بروتين (PPI) لهذه الجينات المتقاطعة (الشكل 2) وتم تصويرها وفقاً لدرجة العقدة، حيث تشير العقد ذات اللون الأحمر الداكن والحجم الأكبر إلى درجة أعلى (الشكل 3). استُخدم برنامج Cytoscape لتحليل الجينات المستهدفة الأساسية (أهم 20 جينًا) من بين الجينات المتقاطعة، حيث أظهر جين TP53 أعلى درجة بلغت 112، يليه جين AKT1 بدرجة 111 (الشكل 4).
بعد ذلك، تم رفع الجينات المتقاطعة إلى قاعدة بيانات DAVID لإجراء تحليلات إثراء الوجود الجيني (GO) ومسارات KEGG. أسفر تحليل GO عن 4,156 عملية بيولوجية (الجدول التكميلي S3)، و292 مكوناً خلوياً (الجدول التكميلي S4)، و562 وظيفة جزيئية (الجدول التكميلي S5). وتم تمثيل أعلى 10 مصطلحات إثراء ذات دلالة إحصائية في كل فئة بصرياً (الشكل 5A-C). ووفقاً لتحليل KEGG، تم إثراء 187 مساراً بشكل ملحوظ (الجدول التكميلي S6)، وتظهر أعلى 10 مسارات صلة في الشكل 5D. وشملت هذه المسارات المرتبطة بسرطان البروستاتا، والتهاب الكبد B، والبروتيوغليكانات في السرطان، والمقاومة لمثبطات كيناز تيروزين EGFR، واستقلاب الدهون وتصلب الشرايين، وعدوى الفيروس المضخم للخلايا البشري، وسرطان القولون والمستقيم، والمقاومة الغدية، ومسار AGE-RAGE في مضاعفات السكري، ومسار إشارات PI3K-Akt.
الأهداف الرئيسية لـ PLB في علاج سرطان البروستاتا
حدد تحليل علم الصيدلة الشبكي 151 جيناً متقاطعاً بين PLB وسرطان البروستاتا. وبناءً على شبكة PPI، قمنا بفحص أهم 20 جيناً مستهدفاً محورياً محتملاً ذات أعلى اتصال: بروتين الورم p53 (TP53)، وAKT serine/threonine kinase 1 (AKT1)، وsignal transducer and activator of transcription 3 (STAT3)، ومستقبل الإستروجين 1 (ESR1)، ومنظم الموت الخلوي المبرمج BCL2 (BCL2)، والإنترلوكين 6 (IL6)، ومستقبل عامل نمو البشرة (EGFR)، وcatenin beta 1 (CTNNB1)، وعامل نخر الورم (TNF)، وphosphatase and tensin homolog (PTEN)، وcaspase 3 (CASP3)، وmitogen-activated protein kinase 3 (MAPK3)، وعضو الفئة A رقم 1 من عائلة بروتين الصدمة الحرارية 90 ألفا (HSP90AA1)، وSRC proto-oncogene, non-receptor tyrosine kinase (SRC)، ومستقبل غاما المنشط بمضاعف البيروكسيسوم (PPARG)، وmechanistic target of rapamycin kinase (MTOR))، وعضو الفئة B رقم 1 من عائلة بروتين الصدمة الحرارية 90 ألفا (HSP90AB1)، وglycogen synthase kinase 3 beta (GSK3B)، وprostaglandin-endoperoxide synthase 2 (PTGS2)، وmatrix metallopeptidase 9 (MMP9). وقد أظهر TP53 أعلى درجة من الاتصال، يليه AKT1، مما يشير إلى أن هذه قد تكون أهدافاً رئيسية.
لاختيار الأهداف النهائية لعمليات الإرساء والمحاكاة الديناميكية الجزيئية، قمنا بإعطاء الأولوية للجينات التي تشفر بروتينات محفزة للأورام والتي تتوفر لها هياكل بلورية وجيوب ارتباط محددة، بما في ذلك AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2, and MMP9. وفي المقابل، تم استبعاد الجينات الكابحة للأورام، بما في ذلك TP53، لأنها لا تتوافق مع الاستراتيجية العلاجية القائمة على تثبيط الهدف.
وبناءً على ذلك، أُجريت المزيد من دراسات الالتحام الجزيئي. وأظهرت النتائج أن PLB يتفاعل مع AKT1 عبر TRP80 وSER205 وLEU210 وLEU264 وLYS268، بطاقة ارتباط (BE) تبلغ -7.764 kcal/mol27؛ ويتفاعل PLB مع STAT3 عبر GLU612 وSER613 وARG609 وPRO639، بطاقة BE تبلغ -5.149 kcal/mol28؛ ويتفاعل PLB مع ESR1 عبر LEU346 وPHE404 وALA350 وLEU387 وLEU391، بطاقة BE تبلغ -7.165 kcal/mol29؛ ويتفاعل PLB مع BCL2 عبر LYS53 وPHE54 وHIS50، بطاقة BE تبلغ -5.564 kcal/mol30؛ ويتفاعل PLB مع IL6 عبر GLN28 وLYS27 وARG24، بطاقة BE تبلغ -4.462 kcal/mol31؛ ويتفاعل PLB مع EGFR عبر LEU778 وLEU707 وLEU789، بطاقة BE تبلغ -6.255 kcal/mol32؛ ويتفاعل PLB مع TNF عبر TYR59 وGLY121 وLEU120، بطاقة BE تبلغ -6.570 kcal/mol33؛ ويتفاعل PLB مع MAPK3 عبر ALA69 وVAL56 وILE48 وLEU124 وMET125 وLEU173، بطاقة BE تبلغ -7.369 kcal/mol34؛ ويتفاعل PLB مع HSP90AA1 عبر LEU107 وPHE138 وTYR139 وTRP162، بطاقة BE تبلغ -8.947 kcal/mol35؛ ويتفاعل PLB مع SRC عبر LEU276 وTYR343 وMET344 وALA296 وLEU396 وVAL284، بطاقة BE تبلغ -7.469 kcal/mol36؛ ويتفاعل PLB مع PPARG عبر LEU330 وARG288 وILE326 وMET329 وALA292، بطاقة BE تبلغ -6.538 kcal/mol37؛ ويتفاعل PLB مع MTOR عبر ALA2073 وSER2069 وHIS2024، بطاقة BE تبلغ -4.672 kcal/mol38؛ ويتفاعل PLB مع HSP90AB1 عبر TYR134 وPHE133 وTRP157 وLEU102، بطاقة BE تبلغ -6.928 kcal/mol39؛ ويتفاعل PLB مع GSK3B عبر VAL70 وVAL135 وALA83، بطاقة BE تبلغ -6.799 kcal/mol40؛ ويتفاعل PLB مع PTGS2 عبر VAL315 وTHR561 وARG311 وILE558، بطاقة BE تبلغ -5.081 kcal/mol41؛ ويتفاعل PLB مع MMP9 عبر LEU187 وALA189 وMET247 وTYR248 وLEU188 وHIS226 وVAL223، بطاقة BE تبلغ -7.101 kcal/mol42. وباستثناء IL6 وMTOR، كانت طاقات ارتباط PLB مع البروتينات الأخرى أقل من -5 kcal/mol، مما يشير إلى أن PLB قد يرتبط بشكل مستقر بهذه البروتينات (الجدول 1).
بعد ذلك، تم إجراء عمليات محاكاة للديناميكيات الجزيئية لمزيد من التحليل لتفاعلات PLB مع هذه البروتينات المستهدفة وللتحقق من استقرار الارتباط. ورغم أن بعض المركبات حصلت على ترتيب عالٍ في درجات الإرساء (docking scores)، إلا أن عمليات محاكاة الديناميكيات الجزيئية الأولية كشفت عن انزياح مبكر للّيغاند أو تشوهات شكلية شديدة في عدة أنظمة. وبناءً على ذلك، استبعدنا هذه المعقدات غير المستقرة واحتفظنا فقط بتلك التي حافظت على وضعيات ارتباط متسقة بعد الاسترخاء الأولي، ومضينا قدماً في استخدامها كمرشحات لعمليات محاكاة ديناميكيات جزيئية ممتدة. وكانت الأهداف النهائية التي تم الاحتفاظ بها هي AKT1 (الملف التكميلي 1—الشكل التكميلي S1)، وESR1 (الملف التكميلي 1—الشكل التكميلي S2)، وBCL2 (الملف التكميلي 1—الشكل التكميلي S3)، وEGFR (الملف التكميلي 1—الشكل التكميلي S4)، وTNF (الملف التكميلي 1—الشكل التكميلي S5)، وMAPK3 (الملف التكميلي 1—الشكل التكميلي S6)، وHSP90AA1 (الملف التكميلي 1—الشكل التكميلي S7)، وSRC (الملف التكميلي 1—الشكل التكميلي S8)، وPPARG (الملف التكميلي 1—الشكل التكميلي S9). وبعد 200 ns من المحاكاة، استقر RMSD لبنى المعقدات المكونة من PLB مع AKT1 وESR1 وBCL2 وEGFR وTNF وMAPK3 وHSP90AA1 وSRC وPPARG تدريجياً على مدار فترة المحاكاة (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة A). وبالتزامن مع ذلك، استقرت المقاييس مثل Rg (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة B)، وجذر متوسط مربع التقلب (RMSF) (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة C))، والمسافة بين البروتين وموقع ارتباط الليغاند (Dock site-ligand) (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة D)، ومساحة السطح المتاحة للمذيب المدفونة (Buried SASA) (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة E)، وتراكب هيئة الارتباط (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة F) تدريجياً مع تقدم المحاكاة. وتشير هذه النتائج إلى أن معقدات البروتين-ليغاند حافظت على استقرارها البنائي طوال عمليات المحاكاة. حيث وصل كل من RMSD وRg وRMSF والمسافة بين البروتين والليغاند وBuried SASA تدريجياً إلى قيم مستقرة، مما يشير إلى تكون معقد متراص مع تقلبات ذرية محدودة وإشغال مستمر لليغاند داخل جيب الارتباط. بالإضافة إلى ذلك، ظلت مساحة التلامس بين plumbagin والبروتين ثابتة نسبياً بمرور الوقت. كما أظهرت تفاعلات فان دير فال والتفاعلات الكارهة للماء والتفاعلات الكهروستاتيكية أنماطاً مستقرة طوال عمليات المحاكاة، مما يعزز الاستقرار العام لمعقدات البروتين-plumbagin (انظر الملف التكميلي 1—الشكل التكميلي S1-S9، اللوحة G).
بناءً على طاقة الذوبان والتقييم الشامل لكل من RMSD وRg والمسافة وBuried SASA وطاقات التفاعل، تم اختيار مسارات المعقد في الحالة المستقرة لحساب المصطلحات المتعلقة بطاقة الربط (BE) باستخدام طريقة MM-PBSA (Molecular Mechanics-Poisson Boltzmann Surface Area). ولتقديم مقاييس ثقة لتصنيفات الألفة المذكورة، تم تسجيل جميع طاقات الربط الحرة كمتوسط ± SEM المحسوبة من لقطات مستخرجة من مسارات MD المتوازنة (الجدول 2). ومن بين هذه البروتينات، أظهر AKT1 طاقة الربط الحرة الأكثر سالبية، يليه ESR1 وHSP90AA1 وSRC وPPARG، مما يشير إلى أن PLB قد يرتبط بشكل مستقر بهذه البروتينات المستهدفة.
علاوة على ذلك، قامت هذه الدراسة بتحليل البقايا المتفاعلة بين PLB والأهداف (مفصلة في الجدول 3)، ووجدت أن PLB يرتبط بشكل مستقر بالبروتينات المستهدفة بشكل أساسي من خلال الروابط الهيدروجينية (انظر الملف التكميلي 1- الشكل التكميلي S1-S9، اللوحة I)، والتفاعلات الكارهة للماء، وقوى فان دير فالز. ومن خلال تحليل مساهمات طاقات ربط الأحماض الأمينية (انظر الملف التكميلي 1- الشكل التكميلي S1-S9، اللوحة H) وتفاعلات البروتين-PLB، كشفت هذه الدراسة عما يلي: بالنسبة لـ AKT1، فإن الأحماض الأمينية الرئيسية لربط PLB هي TRP80 و LEU264، حيث تلعب قوى فان دير فالز الدور الرئيسي، بينما تلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ ESR1، فإن الأحماض الأمينية الرئيسية هي LEU346 و LEU525، حيث تلعب قوى فان دير فالز الدور الرئيسي، والتفاعلات الكارهة للماء دوراً ثانوياً، والتفاعلات الإلكتروستاتيكية دوراً تكميلياً؛ وبالنسبة لـ BCL2، فإن الأحماض الأمينية الرئيسية هي TYR108 و PHE104، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ EGFR، فإن الأحماض الأمينية الرئيسية هي MET1002 و TYR998، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ TNF-α، فإن الأحماض الأمينية الرئيسية هي TYR59 و HIE15، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ MAPK3، فإن الأحماض الأمينية الرئيسية هي TYR53 و LEU173، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ HSP90AA1، فإن الأحماض الأمينية الرئيسية هي PHE138 و LEU107، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ SRC، فإن الأحماض الأمينية الرئيسية هي LEU276 و LEU396، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية؛ وبالنسبة لـ PPARG، فإن الأحماض الأمينية الرئيسية هي LEU330 و ILE326، حيث تلعب قوى فان دير فالز الدور الرئيسي، وتلعب التفاعلات الإلكتروستاتيكية والكارهة للماء أدواراً ثانوية.
تم بلورة جميع تراكيب البروتينات البلورية المستخدمة في هذه الدراسة بشكل مشترك مع مثبطات معروفة، باستثناء BCL2. ولزيادة التحقق من موثوقية نهج الالتحام لدينا وإمكانية ارتباط PLB، قمنا بتحديد جيوب الارتباط النشطة بناءً على مواقع ارتباط المثبطات الأصلية. وتم إجراء عملية الالتحام لكل من PLB والمثبطات الأصلية المقابلة في الجيوب نفسها، ثم تم حساب ومقارنة طاقات الارتباط الحرة الخاصة بها. وبالنسبة لكل هدف، تم أخذ وضعيات الالتحام للمثبط الأصلي التي أعادت إنتاج هيئة الارتباط البلورية بدقة فقط في الاعتبار لمقارنة الطاقة. وكما هو موضح في الجدول 4، كانت طاقات الارتباط الحرة لـ PLB عند الالتحام قابلة للمقارنة مع طاقات المثبطات الأصلية المقابلة عبر جميع الأهداف الثمانية، مما يشير إلى أن PLB يمتلك ألفة ارتباط بالجيوب مماثلة لهذه المركبات النشطة المعتمدة. وتشير هذه النتيجة إلى أن PLB، كجزيء هيكلي جديد، قد يكون بمثابة قالب كيميائي واعد لتطوير عوامل جديدة مضادة لسرطان البروستاتا تستهدف هذه المراكز المسرطنة.
القيمة الإنذارية للجينات المستهدفة في سرطان البروستاتا
كأهداف ممثلة، قمنا بتقييم الأهمية الإنذارية لكل من SRC و MAPK3 في سرطان البروستاتا باستخدام مجموعات بيانات TCGA. بالنسبة لـ SRC، أظهر تحليل توزيع التدرج أن التعبير المرتفع لـ SRC كان مرتبطاً بزيادة معدلات الوفيات وتقصير فترات البقاء على قيد الحياة المتابعة بشكل ملحوظ (الشكل 6A). وأكد تحليل كابلان-ماير للبقاء (الشكل 6B) أن المجموعة ذات التعبير المرتفع سجلت بقاءً إجمالياً أسوأ بكثير من المجموعة ذات التعبير المنخفض (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). كما أشارت منحنيات المخاطر التراكمية إلى احتمالية أعلى للوفاة في أي نقطة زمنية ضمن مجموعة التعبير المرتفع، مما يحدد SRC كعامل خطر لسوء الإنذار. وأظهرت منحنيات ROC المعتمدة على الوقت (الشكل 6C) قيم AUC بلغت 0.99 و 0.878 و 0.829 عند سنة و 3 سنوات و 5 سنوات على التوالي، وجميعها تجاوزت 0.7، مما يشير إلى أداء تنبؤي ممتاز للبقاء على قيد الحياة على المدى القصير والطويل. وبشكل جماعي، تشير هذه النتائج إلى أن التعبير المرتفع لـ SRC قد يعمل كعلامة جزيئية مستقلة للإنذار غير المواتي في سرطان البروستاتا.
بالنسبة لـ MAPK3، كشف توزيع التدرج أن التعبير المرتفع ارتبط بزيادة تطور الورم وقصر مدة البقاء على قيد الحياة دون تقدم المرض، مما يشير بشكل أولي إلى أن MAPK3 قد يكون جين خطر محتملاً (الشكل 7A). وأظهر تحليل كابلان-ماير للبقاء على قيد الحياة دون تقدم المرض (الشكل 7B) أن المجموعة ذات التعبير المرتفع كانت تعاني من مدة بقاء على قيد الحياة دون تقدم المرض أقصر بشكل ملحوظ من المجموعة ذات التعبير المنخفض (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046–2.391)، حيث بلغ متوسط البقاء على قيد الحياة دون تقدم المرض 5.8 years فقط في المجموعة ذات التعبير المرتفع. كما أكدت منحنيات المخاطر التراكمية وجود احتمالية أعلى لتطور المرض في أي نقطة زمنية. ومع ذلك، كشفت منحنيات ROC المعتمدة على الوقت (الشكل 7C) أن قيم AUC كانت 0.568 و0.563 و0.574 فقط عند 1 و3 و5 years على التوالي، وهي جميعاً أقل بكثير من 0.7، مما يشير إلى أن MAPK3 وحده يمتلك قيمة تنبؤية مستقلة محدودة لخطر تطور سرطان البروستاتا. وبشكل عام، بينما يرتبط التعبير المرتفع لـ MAPK3 بسوء حالة البقاء على قيد الحياة دون تقدم المرض في سرطان البروستاتا، فإن فائدته كمؤشر إنذاري وحيد تظل مقيدة بدقة تنبؤية متواضعة.
بيان توفر البيانات
تتضمن المقالة أو المواد التكميلية المساهمات الأصلية المقدمة في هذه الدراسة.
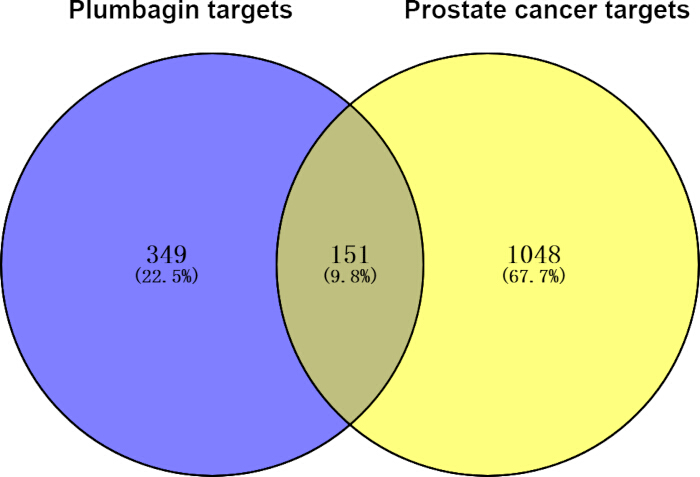
الشكل 1: تقاطع أهداف plumbagin وسرطان البروستاتا. يمثل اللون الأزرق عدد أهداف plumbagin، ويمثل اللون الأصفر عدد أهداف سرطان البروستاتا.
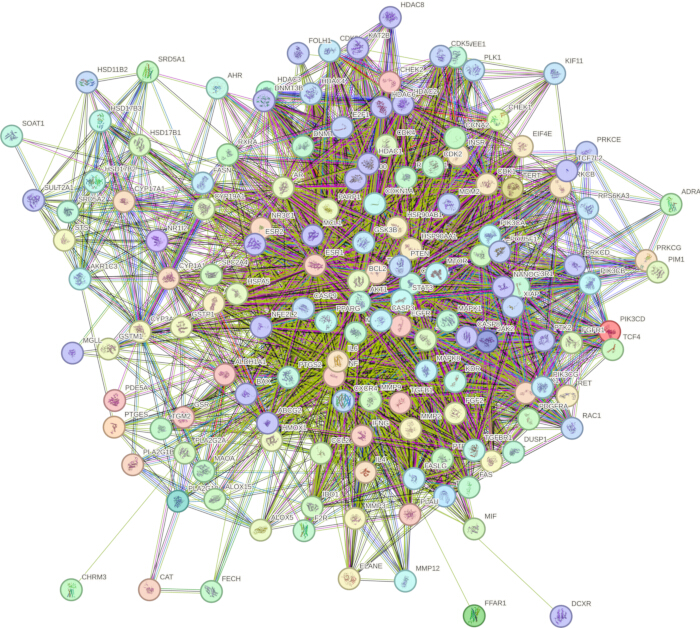
الشكل 2: شبكة تفاعل البروتين-بروتين للأهداف المتقاطعة البالغ عددها 151 هدفاً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
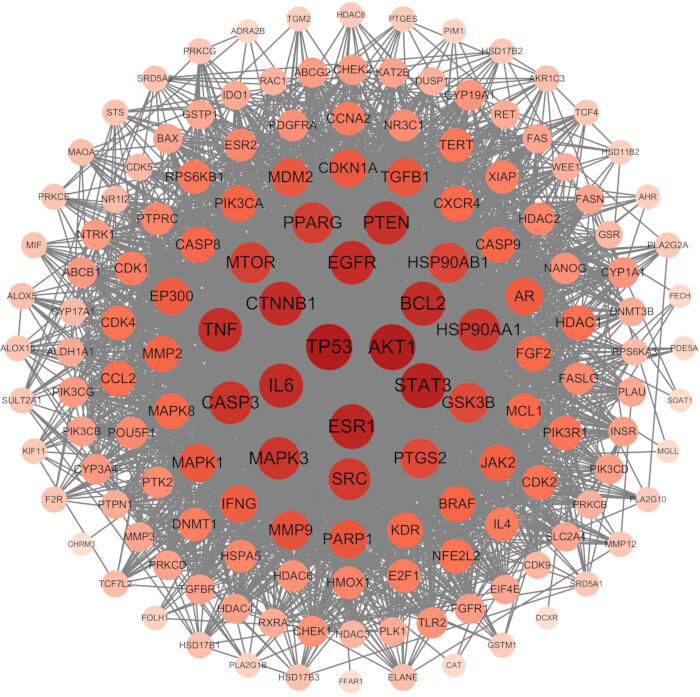
الشكل 3: تصور للأهداف الأساسية البالغ عددها 151 بناءً على درجة العقدة في شبكة التفاعل بين البروتينات. يمثل الحجم الأكبر واللون الأعمق للدوائر قيم درجة أعلى في الشبكة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
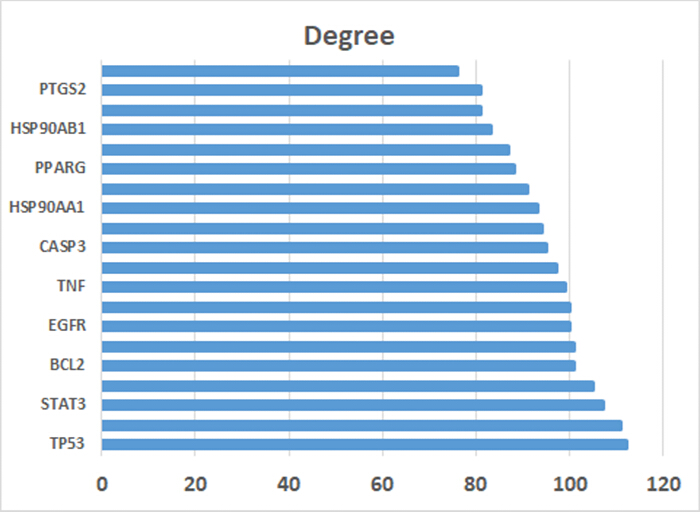
الشكل 4: قيم الدرجة لأبرز 20 هدفاً محورياً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
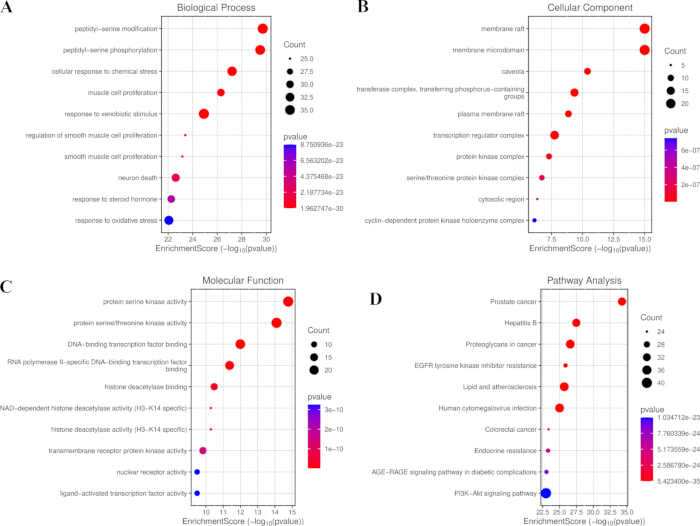
الشكل 5: تحليل الإثراء لـ 151 هدفاً أساسياً. (A) أهم 10 مصطلحات في فئة العملية البيولوجية لتحليل GO، و(B) أهم 10 مصطلحات في فئة المكون الخلوي لتحليل GO، و(C) أهم 10 مصطلحات في فئة الوظيفة الجزيئية لتحليل GO. (D) أهم 10 مسارات مُثراة في KEGG لـ 151 هدفاً أساسياً. الاختصارات: GO = Gene Ontology؛ KEGG = Kyoto Encyclopedia of Genes and Genomes. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
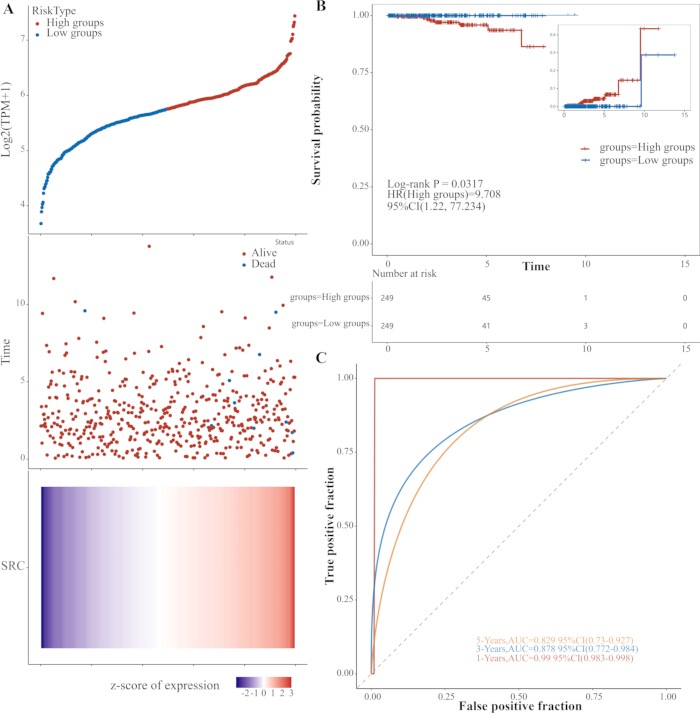
الشكل 6: التحليل الإنذاري لـ SRC في سرطان البروستاتا (TCGA). (A) توزيع التدرج للتعبير عن SRC حسب حالة البقاء على قيد الحياة ووقت المتابعة. (B) منحنيات كابلان–ماير للبقاء الإجمالي على قيد الحياة لمجموعات التعبير العالي مقابل المنخفض لـ SRC (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). (C) منحنيات ROC المعتمدة على الوقت عند 1 و 3 و 5 سنوات (AUC = 0.990, 0.878, and 0.829). الاختصارات: TCGA = أطلس جينوم السرطان؛ HR = نسبة المخاطر؛ CI = فاصل الثقة؛ ROC = خصائص تشغيل المستقبل؛ AUC = المساحة تحت المنحنى. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
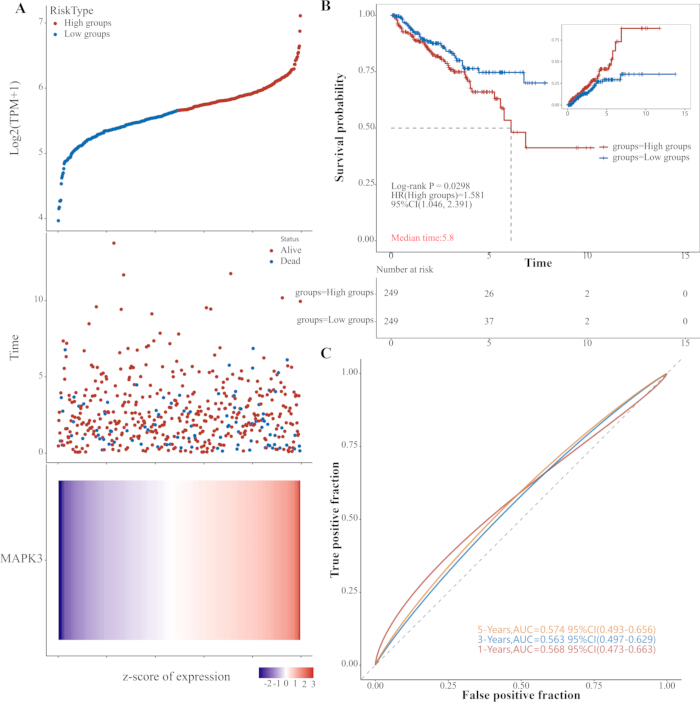
الشكل 7: التحليل الإنذاري لـ MAPK3 في سرطان البروستاتا (TCGA). (A) توزيع التدرج لتعبير MAPK3 حسب حالة تطور المرض والوقت الخالي من تطور المرض. (B) منحنيات كابلان-ماير للبقاء الخالي من تطور المرض لمجموعات التعبير المرتفع مقابل المنخفض لـ MAPK3 (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046-2.391). (C) منحنيات ROC المعتمدة على الوقت عند 1 و3 و5 سنوات (AUC = 0.568, 0.563, and 0.574). الاختصارات: TCGA = أطلس جينوم السرطان؛ HR = نسبة المخاطرة؛ CI = فاصل الثقة؛ ROC = خصائص تشغيل المستقبل؛ AUC = المساحة تحت المنحنى. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الجدول 1: طاقات الارتباط والبقايا المتفاعلة لمادة البلومباجين في الالتحام الجزيئي مع جزيئات الهدف الرئيسية. تشير المراجع المذكورة إلى إدخالات بنية PDB (تخصيصات جيب ارتباط الربيطة البلورية) بدلاً من دراسات التحقق البيولوجي، مع توضيح معرفات PDB المقابلة بشكل صريح. يرجى النقر هنا لتحميل هذا الجدول.
الجدول 2: طاقات الارتباط ومكوناتها لمعقدات البلومباجين-الهدف تحت ظروف الحالة المستقرة (kJ/mol). تم إجراء مسار واحد فقط لمدة 200 ns لكل معقد باستخدام بذرة سرعة عشوائية واحدة، دون تكرارات متوازية. تم استخلاص جميع عينات التشكيلات من منطقة الهضبة المتوازنة الممتدة من 100–200 ns من كل مسار. تمثل ΔEele التفاعل الإلكتروستاتيكي بين الجزيء الصغير والبروتين، وتمثل ΔEvdw تفاعل فان دير فالس، وΔEpol هي طاقة الذوبان القطبية، والتي يمكن أن تمثل طاقة الجهد الإلكتروستاتيكي، وΔEnonpol هي طاقة الذوبان غير القطبية، والتي يمكن أن تمثل التفاعل الكاره للماء. ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol. طاقة ارتباط جيبس، ΔGbind = ΔEMMPBSA + -TΔS. يرجى النقر هنا لتنزيل هذا الجدول.
الجدول 3: مخطط توضيحي للبقايا المتفاعلة من محاكاة الديناميكا الجزيئية لـ plumbagin مع البروتينات المستهدفة. يرجى النقر هنا لتحميل هذا الجدول.
جدول 4: دطاقات الارتباط الحرة لعملية الالتحام لمركب plumbagin والمثبطات الأصلية المتبلورة مع البروتينات التسعة المستهدفة. يرجى النقر هنا لتنزيل هذا الجدول.
الملف التكميلي 1: تحليلات محاكاة الديناميكيات الجزيئية لمعقدات plumbagin مع AKT1 و ESR1 و BCL2 و EGFR و TNF-α و MAPK3 و HSP90AA1 و SRC و PPARG. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S1: الأهداف المحتملة لـ PLB المتوقعة بواسطة قواعد بيانات SwissTarget وSEA وTargetNet وPharmMapper وCTD وTCMSP وHERB.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S2: الأهداف المحتملة لسرطان البروستاتا التي تم التنبؤ بها بواسطة قواعد بيانات GeneCards وDrugBank وTCMSP وCTD وHERB.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S3: العمليات البيولوجية لـ GO المخصبة لـ 151 هدفاً متداخلاً بين PLB وسرطان البروستاتا.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S4: المكونات الخلوية لـ GO المثرية لـ 151 هدفاً متداخلًا بين PLB وسرطان البروستاتا.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي S5: الوظائف الجزيئية لـ GO المخصبة لـ 151 هدفاً متداخلًا بين PLB وسرطان البروستاتا.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S6: مسارات KEGG المثرية بشكل ملحوظ لـ 151 هدفاً مشتركاً بين PLB وسرطان البروستاتا.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
أظهرت الدراسات أن AKT1 و ESR1 و BCL2 و EGFR و TNF و MAPK3 و HSP90AA1 و SRC و PPARG تؤدي أدواراً متنوعة في تعزيز تطور السرطان. ويُعد مسار إشارات فوسفاتيديل إينوسيتول 3-كيناز (PI3K)/بروتين كيناز السيرين/ثريونين (AKT)/الهدف الميكانيكي للراباميسين (mTOR) مساراً حيوياً لنقل الإشارات داخل الخلايا ينظم عمليات فيزيولوجية مرضية مختلفة، بما في ذلك نمو الخلايا، وتكاثرها، والموت الخلوي المبرمج، وتكون الأوعية الدموية، والاستجابات الالتهابية، والانجذاب الكيميائي43. ويُعتبر AKT كينازاً هدفياً هاماً في المصب لـ PI3K، كما يُعد p-AKT ضرورياً لمسار الإشارات هذا. ويمارس p-AKT تأثيراته المضادة للموت الخلوي المبرمج عن طريق تنشيط بروتين Bcl-2 المضاد للموت الخلوي المبرمج وتقليل تنشيط بروتين Bax المحفز للموت الخلوي المبرمج4. أما GSK3β فهو كيناز رئيسي من عائلة السيرين/ثريونين داخل الخلايا وجزيء هدف هام في المصب لـ AKT، حيث ينظم الدورة الخلوية، والموت الخلوي المبرمج، وغزو/انتقال الخلايا، وتكون الأوعية الدموية من خلال المشاركة في مسارات إشارات متعددة45. ويُعد mTOR بروتين كيناز سيرين/ثريونين محفوظاً للغاية وهدفاً في المصب لمسار إشارات PI3K/AKT؛ حيث يقوم AKT بفسفرة mTOR لتكوين p-mTOR وتنشيطه، مما يعز لاحقاً ترجمة mRNA وينظم الأنشطة الفيزيولوجية مثل التمثيل الغذائي للخلايا، ونموها، وتكاثرها، وبقائها46.
يتواجد EGFR وربيطتاه EGF و TGFα في كل من الخلايا الحميدة والخبيثة في البروستاتا. ويلعب التفاعل بين الربيطتين EGF/TGFα ومستقبل EGFR دوراً هاماً في نمو البروستاتا وتطورها، وكذلك في بدء سرطان البروستاتا وتطوره47. وقد وجد Visacorpi وآخرون48 أن التعبير العالي عن EGFR يرتبط ارتباطاً وثيقاً بسرطان البروستاتا من الدرجة العالية وسوء الإنذار. وأفاد Ibrahim وآخرون49 أن التعبير عن EGFR يكون أعلى في أنسجة البروستاتا الطبيعية أو تضخم البروستاتا الحميد منه في أنسجة سرطان البروستاتا. كما وجد Davies وآخرون50 وجود ارتباط سلبي بين التعبير عن مستقبل الأندروجين وألفة ارتباط EGF بمستقبل EGFR في عينات سرطان البروستاتا، مما يشير بشكل غير مباشر إلى أن تنشيط نظام إشارات EGF/EGFR يشارك في تطور وتفاقم سرطان البروستاتا المستقل عن الأندروجين.
يُعد مسار كيناز البروتين المنشط بالميتوجين (MAPK)، المعروف أيضاً باسم شلال RAS/RAF/MEK/ERK، مسار إشارات حيوياً يشارك في نمو الخلايا وتكاثرها وبقائها. تلاحظ تكرار حدوث طفرات في مكوناته الأساسية، بما في ذلك RAS و RAF و MEK و ERK، في أنواع مختلفة من السرطانات، مما يؤثر بشكل كبير على تطور الورم وتطوره51. يتم نقل إشارات MAPK بواسطة ERKs، وهي كينازات بروتينية من نوع سيرين/ثريونين تعمل كجزيئات رئيسية لنقل الإشارة التي تنظم إرسال الإشارات من عوامل النمو، والهرمونات، والنواقل العصبية، والمحفزات الأخرى خارج الخلوية52. وقد ارتبط الفرط في تنشيط مكونات هذا المسار، لا سيما من خلال الطفرات أو الإشارات الشاذة، بالعديد من أنواع السرطان. تقوم الكينازات الموجودة في الجزء العلوي من المسار MEK1/2 بتنشيط ERK1/2 مباشرة عند النهاية الطرفية للمسار. وبدورها، تقوم ERK1/2 المنشطة بفسفرة مجموعة من الركائز النووية والسيتوبلازمية، بما في ذلك عوامل النسخ والجزيئات التنظيمية، مما يؤدي إلى تحفيز سريع للتعبير عن جينات الاستجابة المبكرة التي تتحكم في تكاثر الخلايا53,54. وفي النهاية، تعز هذه البروتينات المنشطة التعبير عن جزيئات مؤثرة في المصب، مما يثير وينظم التحول المسرطن أو التكاثر الخلوي غير المنضبط. ومن بين هذه البروتينات، يلعب ERK1 (MAPK3)، بوصفه كينازاً وثيق الصلة في مسار إشارات MAPK/ERK، دوراً رئيسياً في نقل الإشارات الخلوية وهو ضروري لتنظيم عمليات مثل تكاثر الخلايا وتمايزها وبقائها في حالات السرطان، بما في ذلك سرطان البروستاتا5.
تعد بروتينات الصدمة الحرارية (HSPs) مرافقات جزيئية تمنع تحلل البروتينات العميلة المرتبطة بها. وفي السرطانات البشرية، غالباً ما يزداد تعبير بروتينات HSPs ويكون مرتبطاً ارتباطاً وثيقاً بتطور الورم، مما يساهم في تكون الأورام، وتولد الأوعية الدموية، ومقاومة الموت الخلوي المبرمج، والنقائل السرطانية56,57. ومن خلال الحفاظ على استقرار البروتينات العميلة، بما في ذلك مستقبل الأندروجن (AR)، ومستقبل الإستروجين (ER)، وMYC، تنظم بروتينات HSPs مسارات إشارات حاسمة مثل PI3K/Akt وJAK/STAT3 وPKL1 وMAPK، مما يؤدي في النهاية إلى تعزيز نمو الخلايا غير المنضبط، وتولد الأوعية الدموية المستمر، والهروب من الموت الخلوي المبرمج، وغزو الورم، والنقائل السرطانية58,59,60. وقد تم تحديد HSP90، وهو عضو رئيسي في هذه العائلة، كهدف علاجي محتمل في سرطان البروستاتا59,61,62. وفي خلايا سرطان البروستاتا، يتفاعل HSP90 مع كل من AR-FL وAR-V7 ويعمل على استقرارهما، مما يحافظ على قدرتهما على الارتباط بالربيطة، ويرتبط تعبير HSP90 ارتباطاً إيجابياً بتطور المرض ومستويات AR-FL/AR-V763. ويؤدي التثبيط الدوائي لـ HSP90 إلى تعزيز التحلل البروتيزومي لكل من AR-FL وAR-V7، مما يقلل من نمو الورم والنقائل السرطانية في خلايا سرطان البروستاتا المقاومة للإخصاء63. ويعمل HSP90AA1 كمرافق أثناء تنشيط AR، ويؤدي تثبيطه إلى كبح مسارات AKT/mTOR وPLK1. علاوة على ذلك، فإن انخفاض تعبير HSP90AA1 يقلل بشكل كبير من هجرة خلايا سرطان البروستاتا وغزوها وتكاثرها64.
ESR1 هو أحد مكونات نظام مستقبلات الإستروجين المزدوج في البروستاتا البشرية. ESR1 يزداد تعبير ESR1 في التنشؤ新-الظهاري البروستاتي عالي الدرجة (HGPIN)، ومن المرجح أنه يتوسط التأثيرات المسرطنة للإستراديول، كما يشارك في تطور سرطان البروستاتا وتفاقم الورم. وقد حددت الدراسات السريرية الأولية باستخدام التوريميفين، وهو مضاد لمستقبلات ESR1، أن ESR1 يمثل هدفاً واعداً للوقاية من سرطان البروستاتا. وينطوي استخدام مضادات ESR1 على إمكانات كبيرة للوقاية من سرطان البروستاتا وتأخير تطور المرض.65.
يُعد PPARG، وهو أحد أعضاء العائلة الفائقة للمستقبلات النووية، منظمًا رئيسيًا للعمليات الالتهابية6. فعند حدوث عملية الت dimerization غير المتجانسة المحفزة بالربيطة مع مستقبل retinoid X، يرتبط PPARG بعناصر استجابة PPAR في الحمض النووي DNA لتنظيم نسخ جينات مختلفة. ويعمل تنشيط PPARG على تثبيط إشارات NF-κB وMAPK، وتقليل إنتاج TNF-α وIL-6، وبالتالي تخفيف الاستجابات الالتهابية67. وقد أظهرت الدراسات السابقة أن استهداف PPARG يمكن استخدامه في علاج سرطان البروستاتا68. يتمركز بروتين PTGS2 في المنطقة المحيطة بالنواة، ويرتبط بغشاء النواة وغشاء الشبكة الإندوبلازمية، حيث يتم التعبير عنه بسرعة في خلايا مختارة عند تحفيز محدد، ويشارك في التوسط في الاستجابات الالتهابية69.
يُعد PLB أحد العوامل الرئيسية المضادة للسرطان ضد أنواع مختلفة من السرطانات، بما في ذلك سرطان البروستاتا والرئة والثدي والميلانوما وسرطان المبيض19. ويُحدث PLB تأثيراته المضادة للسرطان من خلال التفاعل مع أهداف متعددة والتأثير على مسارات تأشير رئيسية، بما في ذلك AMPK وNFκB وPI3K/AKT/mTOR وSTAT3/PLK1/AKT، مما يؤدي إلى تحفيز الموت الخلوي المبرمج، وإيقاف الدورة الخلوية، وتثبيط الانتقال الورمي وتكون الأوعية الدموية19,70. كما يمكن لـ PLB تحفيز الموت الخلوي المبرمج وتثبيط تكاثر الخلايا الورمية وهجرتها عن طريق خفض جهد الغشاء الميتوكوندري، وزيادة مستويات ROS، وتقليل تعبير بروتين Bcl-271,72. أشارت هذه النتائج إلى أن PLB قد ينظم عمليات خلوية متعددة، بما في ذلك الدورة الخلوية والموت الخلوي المبرمج وتكوين أنواع الأكسجين التفاعلية والبلعمة الذاتية ومسار PI3K/Akt/mTOR. ونظرًا للدور الإيجابي لمسار تأشير PI3K/Akt/mTOR في تكاثر خلايا وأنسجة سرطان البروستاتا، فقد أصبح استهداف هذا المسار خيارًا واضحًا. علاوة على ذلك، أفاد Hafeez وآخرون أن العلاج بـ PLB في نموذج فأر مصاب بسرطان البروستاتا مع تعطيل جين PTEN قد ثبط الانتقال الظهاري الميزنكيمي، ومسارات STAT3 وAKT، والتي تُعد بالغة الأهمية لتطور سرطان البروستاتا73.
تأثر الإمكانات الترجمية لـ PLB بخصائصه الحركية الدوائية وتوافره الحيوي. وبصفته نَفثوكينون شديد الألفة للدهون، يظهر PLB ذوبانية مائية ضعيفة وعمر نصف إطراح قصير (35.89 ± 7.95 min) مع تصفية سريعة، مما يحد من تطبيقه السريري74. ومع ذلك، تم تطوير أنظمة توصيل دوائية متنوعة للتغلب على هذه القيود؛ حيث أدت الليبوزومات المبلبنة بـ PEG إلى تمديد عمر النصف بمقدار 36.38 ضعفاً (1,305.76 ± 278.16 min) والمساحة تحت المنحنى AUC بمقدار 3.13 ضعفاً مقارنة بـ PLB الحر، مع إظهار فعالية فائقة مضادة للأورام وتمديد متوسط البقاء على قيد الحياة في الفئران المصابة بالميلانوما دون سمية ملحوظة74. كما أظهرت استراتيجيات أخرى، بما في ذلك الكرات المجهرية من الشيتوزان (تمديد عمر النصف بمقدار 22.2 ضعفاً)، والليبوزومات الحساسة للحرارة، والجسيمات النانوية الذهبية والمستحلبات النانوية المقترنة بـ PLB، تحسناً مماثلاً في الملامح الحركية الدوائية وتعزيزاً للنشاط المضاد للأورام75,76,7. والأهم من ذلك، يظهر PLB ملف سلامة واعداً في النماذج قبل السريرية، حيث لم تلاحظ أي سمية كبيرة في المعايير الدموية أو الأعضاء الرئيسية عند الجرعات العلاجية74. وبشكل جماعي، تشير نتائجنا الحسابية إلى أن PLB قد يتفاعل بشكل مستقر مع AKT1 وESR1 وBCL2 وEGFR وTNF وMAPK3 وHSP90AA1 وSRC وPPARG، مما قد يؤدي إلى تعديل نشاطها الوظيفي وبالتالي التأثير على العمليات اللاحقة، بما في ذلك نمو الخلايا السرطانية، وتكاثرها، وموتها المبرمج، وتكون الأوعية الدموية، والاستجابات الالتهابية، والانجذاب الكيميائي. ورغم أن هذه النتائج ذات طبيعة حسابية ويجب تفسيرها على أنها مولدة للفرضيات، إلا أن الأدلة قبل السريرية الحالية على النشاط المضاد للأورام لـ PLB، جنباً إلى جنب مع استراتيجيات الصياغة المتقدمة، توفر مبرراً قوياً لمزيد من التحقق التجريبي. إن إجراء دراسات مستقبلية in vitro و in vivo ودراسات أترابية استباقية يعد أمراً ضرورياً لتأكيد التفاعلات المتوقعة والإمكانات العلاجية لـ PLB في سرطان البروستاتا.
وجدت الدراسة الحالية أنه، بالإضافة إلى إمكانية تعديل المسارات التي تشمل AKT1، وESR1، وBCL2، وEGFR، وTNF، وMAPK3، وHSP90AA1، وSRC، وPPARG؛ وقد يتفاعل PLB أيضاً مع هذه البروتينات، مما قد يؤثر على نشاطها الوظيفي، وبالتالي يؤثر على العمليات اللاحقة مثل نمو الخلايا السرطانية، وتكاثرها، والموت الخلوي المبرمج، وتكون الأوعية الدموية، والاستجابات الالتهابية، والجاذبية الكيميائية. ومع ذلك، فإن هذه النتائج ذات طبيعة حاسوبية ويجب تفسيرها على أنها مولدة للفرضيات. علاوة على ذلك، في المختبر, في الجسم الحي، كما أن هناك حاجة لإجراء دراسات أترابية مستقبلية للتحقق من صحة التفاعلات المتوقعة وتأكيد الإمكانات العلاجية لـ PLB في سرطان البروستاتا.
على الرغم من الرؤى القيمة التي قدمتها علم الصيدلة الشبكي ومحاكاة الديناميكا الجزيئية، إلا أن هذه الدراسة تعاني من عدة قيود. ونحن نقر بأن الاعتماد على قواعد البيانات العامة قد يؤدي إلى تحيز بسبب التفاوت في توصيف الجينات وتغطية الأدبيات العلمية. ورغم تطبيق التحقق المتبادل بين قواعد بيانات متعددة لتقليل هذه المشكلة، إلا أن جميع التنبؤات الحسابية تتطلب تأكيداً تجريبياً. وتجدر الإشارة إلى أنه تم إجراء مسار زمني واحد فقط مدته 20 ns لكل معقد باستخدام بذرة سرعة عشوائية واحدة، دون تكرارات متوازية. وقد يؤثر هذا القيد على القوة الإحصائية لطاقات MM-PBSA الحرة، وإن كنا قد خفنا من ذلك عن طريق تمديد طول المحاكاة واستبعاد أول 100 ns كفترة اتزان. لذا، يجب تفسير ألفات الارتباط المسجلة على أنها تقديرات نوعية، وسيكون من القيم إجراء محاكاة مكررة مستقبلاً للتحقق من الصحة. وباعتبارها تحليلاً حسابياً بحتاً، تفتقر هذه الدراسة إلى التحقق in vitro أو in vivo؛ وبناءً على ذلك، فإن الارتباط المتوقع لـ PLB بـ AKT1، و ESR1، و BCL2، و EGFR، و TNF، و MAPK3، و HSP90AA1، و SRC، و PPARG لا يؤكد التثبيط الوظيفي في الأنظمة البيولوجية. بالإضافة إلى ذلك، لا تتطرق الدراسة إلى خصوصية الهدف، أو التوافر الحيوي الخلوي، أو الحركية الدوائية in vivo. وللتحقق من النتائج الحالية أو استبدالها، يجب أن تشمل المناهج التجريبية البديلة رنين بلازمون السطح أو قياس السعرات الحرارية بالمعايرة المتساوية الحرارة لقياس ألفة الارتباط المباشرة، ومقايسات نشاط الكيناز لتأكيد التثبيط الإنزيمي، وبصمة ويسترن لتقييم التأشير المصب (مثل p-AKT و p-EGFR)، والمقايسات الوظيفية القائمة على الخلايا (مثل MTT وقياس التدفق الخلوي) لتقييم التكاثر والموت الخلوي المبرمج في خلايا سرطان البروستاتا. علاوة على ذلك، يعد تثبيط الأهداف الفردية بواسطة CRISPR-Cas9 أو siRNA، جنباً إلى جنب مع نماذج الطعم الغريب في الفئران in vivo، أمراً ضرورياً لتحديد الأدوار السببية والأهمية العلاجية. وتعد هذه التحققات التجريبية ضرورية للانتقال من التنبؤات الحسابية نحو استنتاجات ذات معنى بيولوجي.
ختاماً، تشير هذه الدراسة، باستخدام علم الصيدلة الشبكي والرسو الجزيئي ومحاكاة الديناميكا الجزيئية، إلى أن PLB قد يتفاعل مع AKT1 وESR1 وBCL2 وEGFR وTNF وMAPK3 وHSP90AA1 وSRC وPPARG ويعدل من أنشطتها، مما يؤثر بالتالي على الوظائف البيولوجية للخلايا الورمية. ومع ذلك، وبما أن هذه النتائج حاسوبية بحتة، فينبغي تفسيرها على أنها مولدة لفرضيات وليست نتائج نهائية. وبشكل عام، تقدم نتائجنا رؤى جديدة وأساساً نظرياً للأبحاث التجريبية المستقبلية حول آليات عمل PLB في علاج سرطان البروستاتا، على الرغم من أن الدراسات in vitro وin vivo ضرورية لتأكيد تأثيراته التثبيطية الفعلية وإمكاناته العلاجية.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| قاعدة بيانات السموم الجينية المقارنة | المعهد الوطني لدراسات الصحة والبيئة، المعهد الوطني للاضطرابات العصبية والسكتة الدماغية | https://ctdbase.org/ | تعد قاعدة بيانات التفاعلات الكيميائية والسموم (CTD) قاعدة بيانات قوية ومتاحة للعموم، تهدف إلى تعزيز الفهم حول كيفية تأثير التعرضات البيئية على صحة الإنسان. توفر هذه القاعدة معلومات منقحة يدويًا حول التفاعلات بين المواد الكيميائية والجينات/البروتينات، والعلاقات بين المواد الكيميائية والأمراض، وبين الجينات والأمراض. وتُدمج هذه البيانات مع البيانات الوظيفية وبيانات المسارات للمساعدة في تطوير فرضيات حول الآليات الكامنة وراء الأمراض المتأثرة بالبيئة. |
| سيتوسكيب (Cytoscape) | معهد بيولوجيا الأنظمة (ISB)، ليروي هود | https://cytoscape.org/ | صُمم البرنامج في البداية خصيصاً لشبكات التفاعل الجزيئي الحيوي، ولكنه تطور الآن ليصبح منصة متعددة الاستخدامات لتحليل الشبكات المعقدة، ويُطبق على نطاق واسع في مجالات مثل المعلوماتية الحيوية، وطب النظم، والشبكات الاجتماعية، والشبكات الدلالية. |
| قاعدة بيانات DAVID | المعاهد الوطنية للصحة (NIH) | https://davidbioinformatics.nih.gov/list.jsp | تُعد منصة DAVID، وهي اختصار لـ Database for Annotation, Visualization and Integrated Discovery، المنصة المجانية الأكثر كلاسيكية وانتشاراً عبر الإنترنت للتوصيف الوظيفي لمجموعات الجينات وتحليل الإثراء. |
| DrugBank | جامعة ألبرتا، كندا | https://go.drugbank.com/ | تُعد DrugBank نظام التشغيل الاستخباري للصناعات الدوائية الحيوية، حيث توفر المعرفة الطبية الحيوية الأكثر شمولاً وهيكلة للمساعدة في تطوير العلاجات من مرحلة الاكتشاف وصولاً إلى التأثير على المرضى. |
| جين كارد (GeneCard) | LifeMap Sciences | https://www.genecards.org/ | تعد GeneCards قاعدة بيانات تكاملية قابلة للبحث، توفر معلومات شاملة وسهلة الاستخدام حول جميع الجينات البشرية المشروحة والمتوقعة. وتعمل قاعدة المعرفة هذه على دمج البيانات التي تتمحور حول الجينات تلقائياً من 193 مصدراً إلكترونياً، بما في ذلك المعلومات الجينومية، والترانسكريبتومية، والبروتومية، والجينية، والسريرية، والوظيفية. |
| gmx_MMPBSA | جامعة كولومبيا في ميديلين | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | أداة gmx_MMPBSA، وهي أداة مفتوحة المصدر لحساب الطاقة الحرة طورها Valdéاعتُمدت طريقة s-Tresanco وآخرون لحساب طاقات الارتباط الحرة استناداً إلى منهجيتي MM/PBSA وMM/GBSA. وبناءً على محرك MMPBSA.py من مجموعة AmberTools، يقوم البرنامج بمعالجة ملفات المسار (trajectory files) الناتجة عن برنامج GROMACS مباشرةً دون الحاجة إلى تحويل يدوي للتنسيق. كما أُجري تحليل تفكيك الطاقة على مستوى البقايا (Residue-wise energy decomposition)، والمسح الحاسوبي بالألانين (computational alanine scanning)، وتصحيح الإنتروبيا لتقدير مساهمات الارتباط للأحماض الأمينية الرئيسية، واستُخدمت وحدة gmx_MMPBSA_ana المدمجة للتحليل الإحصائي وتصور مكونات الطاقة. |
| GROMACS | المعهد الملكي للتكنولوجيا (KTH)، جامعة أوبسالا | www.gromacs.org | يُعد GROMACS حزمة برمجية متعددة الاستخدامات لإجراء محاكاة الديناميكيات الجزيئية، أي محاكاة معادلات نيوتن للحركة لأنظمة تحتوي على مئات إلى ملايين الجسيمات، وهو مشروع مدفوع بمساهمات المجتمع. نرحب بالمساهمات بأشكال عديدة، بما في ذلك تحسينات التوثيق، والرقع البرمجية لإصلاح الأخطاء، وتقديم المشورة في المنتديات، وبلاغات الأخطاء التي تتيح لنا إعادة إنتاج المشكلة، وإضافة وظائف جديدة. |
| عشبة | جامعة بكين للطب الصيني، جامعة بكين للطب الصيني. | http://herb.ac.cn/ | قاعدة بيانات للأدوية الصينية التقليدية تعتمد على المراجع والتجارب عالية الإنتاجية. |
| PharmMapper | كلية العلوم والتكنولوجيا الصيدلانية / كلية علوم وهندسة المعلومات، جامعة شرق الصين للعلوم والتكنولوجيا | https://www.lilab-ecust.cn/pharmmapper/index.html | يُعد خادم PharmMapper خادم ويب متاحاً مجانًا، صُمم لتحديد المرشحين المحتملين للأهداف الجزيئية لجزيئات المسبار الصغيرة المعطاة (الأدوية، أو المنتجات الطبيعية، أو المركبات الأخرى المكتشفة حديثًا والتي لم تُحدد أهداف ارتباطها بعد) باستخدام نهج رسم خرائط الفارماكوفور. وبفضل طريقة رسم الخرائط عالية الكفاءة والمتانة، يتميز PharmMapper بقدرة إنتاجية عالية ويمكنه تحديد المرشحين المحتملين للأهداف من قاعدة البيانات في غضون ساعات قليلة. |
| PubChem | المعاهد الوطنية للصحة (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | تعد قاعدة بيانات PubChem قاعدة بيانات كيميائية مفتوحة في المعاهد الوطنية للصحة (NIH). |
| PyMOL | شيرودر (Schruder)öدينجر | https://pymol.org | برنامج PyMOL، الذي طوره في البداية Warren Lyford DeLano وتتولى صيانته حالياً شركة Schrödingeröتعد شركة PyMOL, Inc. أداة تصوير جزيئي متعددة المنصات مُعتمدة على نطاق واسع في البيولوجيا التركيبية واكتشاف الأدوية بمساعدة الحاسوب. وقد تم تحميل تراكيب معقدات البروتين والرابطة التي تم تنزيلها من RCSB PDB إلى برنامج PyMOL لتصور هيئات الارتباط، والروابط الهيدروجينية، وبقايا الأحماض الأمينية الرئيسية المتفاعلة. كما تم إنتاج التراكب التركيبي، وتصوير الأسطح، والرسومات الجزيئية عالية الدقة المخصصة للنشر العلمي عبر واجهة برمجة Python المدمجة. |
| بنك بيانات البروتينات RCSB | مختبر الأبحاث التعاوني للمعلوماتية الحيوية البنيوية | https://www.rcsb.org/ | يعمل بنك بيانات البروتينات التابع لمختبر أبحاث المعلوماتية الحيوية البنيوية (RCSB PDB) كمركز بيانات في الولايات المتحدة ضمن اتحاد بنك بيانات البروتينات العالمي (wwPDB)، والذي أسسته وقادته هيلين م. بيرمان عام 198. ويقوم المركز بأرشفة البنى الذرية ثلاثية الأبعاد المحددة تجريبياً للبروتينات والأحماض النووية ومعقداتها، والتي تم تحليلها بواسطة حيود الأشعة السينية، والمجهر الإلكتروني المبرد، وطيف الرنين المغناطيسي النووي (NMR)، كما يدمج الملايين من نماذج بنية البروتينات المتوقعة بواسطة الذكاء الاصطناعي من AlphaFold. وتدعم البوابة الإلكترونية البحث متعدد الأبعاد، والتصور الجزيئي ثلاثي الأبعاد في الوقت الفعلي، وتنزيل ملفات الإحداثيات بنظام الدفعات، وتدوينات المراجع المتقاطعة التي تربط البيانات البنيوية بوظائف الجينات والأمراض والربيطات الجزيئية الصغيرة، وهي موارد مستخدمة على نطاق واسع في دراسات تحديد الأهداف والالتحام الجزيئي. |
| تحليل العناصر الطيفية | مختبر شوكيت في قسم الكيمياء الصيدلانية بجامعة كاليفورنيا، سان فرانسيسكو (UCSF) | https://sea.bkslab.org/ | يعمل نهج مجموعة التشابه (SEA) على ربط البروتينات بناءً على التشابه الكيميائي لمجموعات ربيطاتها. ويمكن استخدامه للبحث السريع في قواعد بيانات المركبات الضخمة وبناء خرائط تشابه عابرة للأهداف. |
| قاعدة بيانات STRING | التحالف العالمي للبيانات الحيوية (Global Biodata Coalition) وإليكسير (ELIXIR). | https://cn.string-db.org/ | تُعد STRING قاعدة بيانات للتفاعلات البروتينية-البروتينية المعروفة والمتوقعة. وتشمل هذه التفاعلات ارتباطات مباشرة (فيزيائية) وغير مباشرة (وظيفية)؛ وهي مستمدة من التنبؤ الحوسبي، ومن نقل المعرفة بين الكائنات الحية، ومن التفاعلات المجمعة من قواعد بيانات (أولية) أخرى. |
| خادم الويب Swiss Dock | مجموعة النمذجة الجزيئية في جامعة لوزان والمعهد السويسري للمعلوماتية الحيوية SIB | https://www.swissdock.ch/ | يُعد SwissDock خدمة إلكترونية تتنبأ بالتفاعلات الجزيئية المحتمل حدوثها بين بروتين مستهدف وجزيء صغير. |
| SwissTarget | مجموعة النمذجة الجزيئية في SIB | المعهد السويسري للمعلوماتية الحيوية | https://swisstargetprediction.ch/index.php | يتيح لك هذا الموقع تقدير الأهداف الجزيئية الكبيرة الأكثر احتمالاً لجزيء صغير، يُفترض أنه نشط بيولوجياً. وتستند هذه التوقعات إلى مزيج من التشابه ثنائي الأبعاد وثلاثي الأبعاد مع مكتبة تضم 370,0 مادة نشطة معروفة تؤثر على أكثر من 300 بروتين من ثلاثة أنواع مختلفة. |
| تارجت نت (TargetNet) | البيولوجيا الحسابية & مجموعة تصميم الأدوية | http://targetnet.scbdd.com/calcnet/index/ | يُعد TargetNet خادماً إلكترونياً مفتوحاً يمكن استخدامه لشبك أو التنبؤ بارتباط أهداف متعددة لأي جزيء معين. |
| قاعدة بيانات ومنصة تحليل فارماكولوجيا النظم للطب الصيني التقليدي | شركة Zhejiang Jiwei Health المحدودة | https://www.tcmsp-e.com/index.php | تُعد منصة TCMSP منصة فريدة في علم الصيدلة النظمي للأدوية العشبية الصينية، حيث ترصد العلاقات بين الأدوية والأهداف والأمراض. وتتضمن قاعدة البيانات المواد الكيميائية، والأهداف، وشبكات التفاعل بين الدواء والهدف، والشبكات المرتبطة بالدواء والهدف والمرض، بالإضافة إلى الخصائص الحركية الدوائية للمركبات الطبيعية، بما في ذلك التوافر الحيوي الفموي، والتشابه الدوائي، ونفاذية الظهارة المعوية، والحاجز الدموي الدماغي. والذوبانية المائية وما إلى ذلك. وقد أثار هذا الاختراق العلمي اهتماماً جديداً بالبحث عن عقاقير مرشحة في أنواع مختلفة من الأعشاب الصينية التقليدية. |
| قاعدة بيانات UniProt | المعهد الأوروبي للمعلوماتية الحيوية (EMBL-EBI)، والمعهد السويسري للمعلوماتية الحيوية (SIB)، ومورد معلومات البروتين (PIR) | https://www.uniprot.org/ | تعد UniProt القاعدة العالمية’المورد الرائد عالي الجودة والشامل والمتاح مجانًا لمعلومات تسلسل البروتين ووظائفه |
| أداة Venny 2.1 عبر الإنترنت | المركز الوطني للتكنولوجيا الحيويةíأ، (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | يتكون Venny من ملف html قياسي واحد. يمكنك حفظه على القرص الصلب الخاص بك، وفتحه باستخدام متصفحك المفضل، والبدء في رسم مخططات فين (Venn diagrams) رائعة في غضون ثوانٍ، حتى بدون اتصال بالإنترنت. |
| VMD | مجموعة أبحاث الفيزياء الحيوية النظرية والحوسبية (TCBG) في معهد بكمان، جامعة إلينوي في أوربانا شامبين، الولايات المتحدة الأمريكية | Visual Molecular Dynamics (VMD) هو برنامج متخصص في التصوير والتحليل الجزيئي، وهو مصمم لمساعدة المستخدمين على تصور البنية الجزيئية والنتائج المستخلصة من محاكاة الديناميكا الجزيئية. تم تطوير VMD في جامعة إلينوي في أوربانا-شامبين (University of Illinois at Urbana-Champaign) من قبل T. Humphrey Ware، ويتم صيانته حالياً من قبل مجموعة البحث الخاصة بـ Ken D. Smith. يتميز VMD بقدرته على التعامل مع الأنظمة الجزيئية الكبيرة جداً، ويوفر ميزات متقدمة لإخراج الصور والرسوم المتحركة عالية الجودة. كما يتميز بمرونة عالية بفضل دعمه للغة Tcl وPython، مما يسمح للمستخدمين بكتابة نصوص برمجية لأتمتة المهام وتحليل البيانات. يدعم VMD مجموعة واسعة من تنسيقات الملفات الشائعة، مما يجعله أداة قياسية في مجالات الكيمياء الحيوية، والبيولوجيا الحاسوبية، وعلم المواد. | يُعد برنامج VMD (Visual Molecular Dynamics) برنامجاً مجانياً متعدد المنصات للتصور الجزيئي وتحليل المسارات، وقد طورته مجموعة الفيزياء الحيوية النظرية والحاسوبية بقيادة البروفيسور Klaus Schulten في جامعة University of Illinois Urbana-Champaign. ويدعم البرنامج هياكل PDB القياسية ومسارات الديناميكا الجزيئية (MD) الناتجة عن برامج GROMACS وNAMD وAmber، مع توفير أنماط متنوعة للتجسيد الجزيئي وواجهة برمجة نصية مدمجة بلغة Tcl. وقد أُجريت تحليلات كمية تشمل جذر متوسط مربع الانحراف (RMSD)، وإشغال الروابط الهيدروجينية، ومساحة السطح المتاحة للمذيب (SASA)، وهندسة جيب ارتباط اللجين، وذلك لتوصيف التفاعلات الديناميكية بين البروتين واللجين والتقلبات التشكيلية. |
المراجع
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.