نقدم هنا بروتوكول تشريح يحافظ على الغدة الصنوبرية، والتي غالباً ما تُفقد عند إزالة الدماغ من القبة الجمجمية. يضمن هذا البروتوكول الاحتفاظ بالغدة الصنوبرية في تحضيرات دماغ الفأر الجنينية وفي مراحل ما بعد الولادة المبكرة للتطبيقات اللاحقة، بما في ذلك الكيمياء النسيجية المناعية، والتهجين الموضعي in situ، والترانسكريبتوميات المكانية.
مقالة منهجية
حفظ الغدة الصنوبرية في تحضيرات دماغ الفئران في الفترة المحيطة بالولادة
137 مشاهدة
⸱
سبتمبر 11, 2026
في هذه المقالة
ملخص
الملخص
تتشكل الغدة الصنوبرية، وهي بنية غدية عصبية تفرز الميلاتونين، من بدأت (anlage) عند الخط المتوسط الظهري في الدماغ الأمامي للجنين. وفي اليوم الجنيني (E) 14.5 في الفأر، يظهر رتج صنوبري كبروز من سقف الدماغ البيني بين الحويصلات النهائية المزدوجة. ويكون هذا الرتج في اتصال وثيق مع الغضروف والأنسجة السحائية والوعائية التي تعلوه. ويسهل فقدان هذا الرتج عند فتح القبو القحفي لاستخراج الدماغ في المراحل الجنينية المتأخرة أو المراحل المبكرة بعد الولادة. ورغم دورها الهام في الغدد الصم العصبية، لا يزال التطور المبكر للغدة الصنوبرية وآليات الإشارات التي تنظم هذه العملية غير مفهومة بشكل كافٍ، ويرجع ذلك جزئياً إلى صعوبة الحفاظ على هذه البنية سليمة خلال المراحل الجنينية لتطور دماغ الفأر.
تُقدم هذه المقالة إجراءً مبتكراً للتشريح يحافظ على الغدة الصنوبرية مع الإبقاء على سلامتها الهيكلية واتصالها بسقف الدماغ البيني أثناء عزل الدماغ من المراحل الجنينية وحتى اليوم السابع (P7) بعد الولادة. تم استعراض هذا الإجراء باستخدام دماغ فأر في المرحلة الجنينية E18.5، وبذلك يكون مناسباً للتطبيقات اللاحقة التي تتطلب الحفاظ على بنية الأنسجة، بما في ذلك التهجين الموضعي (in situ hybridization)، والكيمياء النسيجية المناعية، والترانسكريبتوميات المكانية. كما يمكن استخدام هذا البروتوكول لعزل الغدة الصنوبرية النامية، مما يحسن من التمثيل النوعي للغدة الصنوبرية في تحليلات الترانسكريبتوم والبروتيوم، وهو أمر يمثل تحدياً لولا ذلك بسبب صغر حجمها.
المقدمة
تعد الغدة الصنوبرية بنية عصبية صماء صغيرة تقع في الخط المتوسط الظهري لدماغ الفقاريات، وتلعب دوراً مركزياً في تنظيم الفسيولوجيا اليوماوية من خلال الإفراز الإيقاعي لهرمون الميلاتونين1,2. خلال التخلق الجنيني في الثدييات، تنشأ الغدة الصنوبرية من الخط المتوسط الظهري للدماغ الأمامي النامي. وفي الفئران، يبدأ تطور الغدة الصنوبرية عندما تشكل منطقة متخصصة من الظهارة العصبية للدماغ البيني الظهرية المبدأ الصنوبري/الردب الصنوبري، والذي يبرز لاحقاً ليشكل الرتج الصنوبري في اليوم الجنيني (E) 14.53,4,5. يرتبط هذا الرتج بسقف الدماغ البيني ويظهر بين الحويصلات النهائية المزدوجة. ومع تقدم التطور، يرتبط هذا الرتج ارتباطاً وثيقاً بالبنى التي تعلوه في الخط المتوسط الظهري للدماغ، وبالأخص الجيب السهمي العلوي (SSS)، والجيب المستعرض (TS)، وهما قناتان وريديتان تمتدان على طول السطح الظهري للدماغ الأمامي6. تقع الغدة الصنوبرية النامية مباشرة تحت تقاطع SSS و TS، ويكون ارتباطها الدقيق بالدماغ البيني الظهري عرضة للتلف بشكل خاص عند إزالة البنى الوعائية السحائية التي تعلوها لاستخراج الدماغ من القبو القحفي7. وهذا يجعل الغدة الصنوبرية عرضة للتلف بشكل خاص، حيث قد تُنزع عند فتح القبو القحفي لاستخراج الدماغ. ونتيجة لذلك، غالباً ما تُفقد الغدة الصنوبرية أثناء عمليات التشريح الروتينية، مما يحد من تحليل بنيتها وتركيبها الجزيئي في العينات السليمة.
نصف هنا بروتوكولاً تفصيلياً خطوة بخطوة لتشريح دماغ الفأر مع الحفاظ على الغدة الصنوبرية واتصالها بسقف الدماغ البيني. هذه الطريقة قابلة للتطبيق على المراحل الجنينية بدءاً من E16.5 وصولاً إلى المراحل المبكرة بعد الولادة (P7)، وهي مناسبة لدراسات تطور الغدة الصنوبرية باستخدام التهجين الموضعي in situ ، والكيمياء النسيجية المناعية، والنسخيات المكانية. وكعرض للتطبيقات اللاحقة، يتم تقديم التهجين الموضعي in situ والكيمياء النسيجية المناعية للعلامة CRX الغنية في الغدة الصنوبرية.
الابتكار الرئيسي في هذه الطريقة هو تقليل الإجهاد الواقع على تراكيب الخط الناصف من خلال الإزالة الدقيقة للارتباطات الفيزيائية التي قد تؤدي لولا ذلك إلى تمزق الغدة الصنوبرية عند إزالة الدماغ من القبو القحفي. ويُعد هذا تحسيناً مقارنة بالإجراء القياسي.
تقتصر طريقة التشريح هذه على المراحل التي تصل إلى P7 لأن التعظم التدريجي للقبو القحفي خلال مرحلة النمو المبكرة بعد الولادة يزيد من صلابة الجمجمة ويقوي ارتباطها بالبنى السحائية والوعائية. وبينما وصفت دراسات عدة إجراءات تشريح الغدة الصنوبرية في القوارض البالغة8، فإن القليل جداً منها ركز على الحفاظ على الغدة الصنوبرية خلال المراحل الجنينية ومراحل ما بعد الولادة المبكرة، حيث تكون الغدة هشّة بشكل خاص وعرضة للتلف أثناء عملية عزل الدماغ.
البروتوكول
تمت الموافقة على جميع الإجراءات وتنفيذها وفقاً للجنة أخلاقيات الحيوان المؤسسية في معهد تاتا للبحوث الأساسية.
1. تحضير المواد
- تأكد من تحضير جميع الأدوات المطلوبة للتشريح الدقيق (راجع جدول المواد) قبل البدء في الإجراء. قم بتعقيم جميع الأدوات باستخدام ethanol بتركيز 70%. وفي حال تجميع العينات لتطبيقات لاحقة مثل النسخ التفراغي المكاني (spatial transcriptomics) أو التهجين الموضعي (in situ hybridization)، قم بمسح الأدوات بمحلول إزالة التلوث من RNase.
- نظف منصة مجهر التشريح بمحلول إزالة التلوث من RNase، واجعل زجاجة من 1× PBS المبرد بالثلج متاحة بالقرب من طاولة التشريح.
- جهز الأدوات والأواني البلاستيكية التالية قبل البدء في هذا الإجراء:
- لتحضير الحيوان، جهز ما يلي: زوجين من الملاقط غير الحادة (blunt forceps)، وزوج واحد من المقصات الجراحية، وطبقي بتري (10 cm)، وعدة أطباق بتري (6 cm؛ حسب الحاجة، طبق واحد لكل رأس).
- لعزل الدماغ، جهز ما يلي: زوج واحد من الملاقط #5، وزوج واحد من الملاقط #55، وزوج واحد من مقصات التشريح الدقيق، وأنابيب أو أطباق تجميع مناسبة للتطبيق اللاحق.
- ملاحظة: إذا كان التطبيق اللاحق يتضمن التهجين الموضعي (in situ hybridization) أو النسخ التفراغي المكاني (spatial transcriptomics)، فنظف أدوات التشريح بمحلول إزالة التلوث من RNase قبل الاستخدام.
2. تحضير الحيوان
- اتبع الخطوات (2.1.1– 2.1.6) للحيوانات من المرحلة E14.5 إلى P0
- يتم القتل الرحيم للأم الحامل وفقاً لإرشادات لجنة أخلاقيات الحيوان المؤسسية. في المثال الموضح، تم القتل الرحيم للأم عن طريق الخلع العنقي.
- أجرِ شقاً في الخط المتوسط للتجويف البطني للأم الحامل للكشف عن الرحم. باستخدام ملقط غير حاد، اسحب قرون الرحم بلطف وضعها في طبق معقم سعة 10 cm يحتوي على 1× PBS بارد جداً.
- اعزل الأجنة الفردية بعناية عن طريق فصلها عن الكيس السلوي والمشيمة المحيطة.
- انقل الأجنة إلى طبق بتري جديد سعة 10 cm يحتوي على 1× PBS بارد جداً وحافظ عليها على الثلج حتى يتم أخذ كل واحد منها لعزل الدماغ. انقل جنيناً واحداً إلى طبق بتري سعة 6 cm يحتوي على PBS بارد جداً.
- بالنسبة للمراحل بعد الولادة حتى P7، يتم القتل الرحيم للجرو وفقاً لإرشادات لجنة أخلاقيات الحيوان المؤسسية. ثم تابع من الخطوة 2.1.6 فصاعداً.
- باستخدام مقص جراحي، افصل الرأس عن الجسم بحيث يتم تضمين الدماغ الخلفي في الرأس لحماية الدماغ الأمامي من التلف غير المقصود.
- اغسل الرأس بـ PBS بارد لإزالة الدم. انقله إلى طبق بتري جديد سعة 6 cm يحتوي على 1× PBS بارد جداً. أبقِ الرأس مغموراً في PBS للسماح بغسل الدم والبقايا خلال خطوات التشريح اللاحقة.
3. إجراء التشريح لعزل الدماغ مع الحفاظ على الغدة الصنوبرية سليمة
ملاحظة: يجب تنفيذ جميع الخطوات أدناه باستخدام مجهر تشريحي. اضبط التكبير إلى 2× على الأقل (أو حسب الحاجة) لرؤية الدماغ والهياكل المحيطة بوضوح طوال عملية التشريح. يجب إجراء عملية التشريح بأكملها في محلول PBS مبرد بالثلج لتقليل تحلل RNA والبروتينات. بالنسبة للخطوات 3.1–3.10، استخدم اليد غير المهيمنة لإمساك الرأس بإحكام وتثبيته طوال الإجراء وفقاً للتعليمات الواردة في الخطوة 3.1. يتم تنفيذ الخطوات 3.2–3.9 مع تثبيت الرأس باليد غير المهيمنة، واستخدام اليد المهيمنة للمهارات الحركية الدقيقة، بدءاً بملقط #5، ثم الانتقال إلى ملقط #55 أو مقص تشريح دقيق كما هو محدد لكل خطوة.
- استخدم ملقطاً من المقاس #5 باليد غير المهيمنة. أدخل الشوكتين في تجاويف العين باستخدام حركة دفع قوية إلى الأسفل. حافظ على الضغط نحو الأسفل لتثبيت الدماغ في قاع طبق بتري حتى اكتمال الخطوة 3.9.
ملاحظة: يقع الدماغ فوق تجاويف العين ولا يتأثر بإدخال الملاقط في هذه التجاويف. ويؤدي الحفاظ على ضغط ثابت للأسفل إلى تثبيت الدماغ طوال عملية التشريح. - باستخدام اليد المسيطرة، قم بقرص وإزالة الجلد الذي يغطي الرأس باستخدام ملقط رقم 5.
ملاحظة: في هذه المرحلة، تظهر القحف الغضروفي الأملس وهو يغطي الدماغ. - أزل جزء الجمجمة الغضروفية (chondrocranium) الذي يغطي الدماغ المتوسط والدماغ الخلفي كما يلي:
- استخدم الملقط رقم 5 لإحداث شقين نافذين في الغضروف القحفي على جانبي الدماغ المتوسط، وتحديداً عند نقطة التقائه بالدماغ الطرفي.
- قم بتمرير أحد طرفي ملقط رقم 5 بشكل مماسي تحت الغضروف القحفي على طول الخط المماسي الوهمي الذي يفصل الدماغ النهائي عن الدماغ المتوسط. أمسك بإحكام ثم قم بتمزيق الغضروف القحفي لفتحه.
- استمر في إزالة الغضروف القحفي بحيث يظهر الدماغ المتوسط والدماغ الخلفي.
- انتقل إلى استخدام ملقط رقم 55. أدخل أحد طرفي الملقط أسفل حافة الهامش الذيلي للجمجمة الغضروفية التي تغطي الدماغ النهائي. افصل الجمجمة الغضروفية برفق عن طريق فك أي ارتباطات مع الأنسجة الوعائية والسحائية.
- باستخدام مقص التشريح المجهري، قم بالقص على طول الخط المتوسط للTelencephalon الظهري باتجاه البصلة الشمية. وباستخدام ملقط رقم 55 مغلق، قم بإزالة أي ارتباطات للقحف الغضروفي بالدماغ برفق. افصل نصفي القحف الغضروفي اللذين يغطيان نصفي الكرة التيلينسيفالية باستخدام الملقط رقم 5.
ملاحظة: في هذه المرحلة، يظهر الجيب السهمي العلوي (SSS) كـوريد أحمر داكن على طول الحافة العلوية للقحف الغضروفي في الدماغ، بينما يظهر الجيب المستعرض (TS) متعامداً مع الجيب السهمي العلوي. - تقع الغدة الصنوبرية أسفل الجيب السهمي العلوي (SSS) مباشرةً. قم بإجراء قطع عند الطرف الأنفي للجيب السهمي العلوي باستخدام مقص التشريح الدقيق.
- باستخدام ملقط رقم 55، قم بإزالة الجزء الظهري من القحف الغضروفي بالكامل من كل جانب للكشف بشكل أفضل عن الغدة الصنوبرية، والجيب السهمي العلوي (SSS)، والجيب المستعرض (TS).
- أجرِ قطعين في المقطع العرضي (TS) على جانبي الغدة الصنوبرية، باستخدام مقص التشريح الدقيق. وباستخدام ملقط رقم 55، قم بفصل الروابط الجانبية للمقطع العرضي (TS).
- باستخدام ملقط رقم 5 وهو مغلق، قم بفصل الجزء المنقاري من الدماغ برفق عن القبو القحفي البطني. مرر الملقط المغلق تحت الجانب البطني للدماغ لفصله تماماً.
- يُحفظ الدماغ مع إبقاء الغدة الصنوبرية سليمة، بما يتناسب مع التطبيقات اللاحقة.
4. الخطوات الحرجة في البروتوكول
ملاحظة: يعتمد نجاح بروتوكول التشريح هذا على التعامل الدقيق مع الارتباطات الوعائية المحيطة بالغدة الصنوبرية. وتعد النقاط التالية حاسمة للحفاظ على سلامة الغدة الصنوبرية طوال إجراء التشريح:
- قم بتثبيت الرأس عن طريق إدخال أسنان ملاقط #5 في كلتا محجر العين، وحافظ على ضغط ثابت نحو الأسفل طوال الخطوات من 3.1 إلى 3.9. يوفر ذلك دعماً مستقراً مع تجنب الضغط المباشر على الدماغ.
- أثناء إزالة الغضروف القحفي (الخطوة 3.3)، تجنب عمليات السحب أو التقشير المفرطة، لأن ذلك قد يؤدي إلى انفصال الغدة الصنوبرية عن الدياينسيفالون الظهري.
- أثناء إزالة الارتباطات السحائية والوعائية (الخطوة 3.4)، وعند فتح الغضروف القحفي للتيلينسيفالون الظهري (الخطوة 3.5)، استخدم فقط أطراف ملاقط #55. قد يؤدي التغلغل العميق للملاقط إلى إتلاف الغدة الصنوبرية، التي تقع مباشرة تحت سقف التيلينسيفالون الذيلي.
- أتمم قطع الجيب السهمي العلوي (الخطوة 3.6) والقطع الثنائي للجيب المستعرض (الخطوة 3.8) قبل استخراج الدماغ. تعمل هذه القطوع على تخفيف التوتر داخل الشبكة الوريدية الظهرية وتمنع تمزق الغدة الصنوبرية أثناء إزالة الدماغ.
- في الخطوة 3.9، قم بإزاحة الدماغ برفق باستخدام ملاقط مغلقة دون السماح باضطراب الخط المتوسط الظهري. يجب أن ينفصل الدماغ بحرية عن القبو القحفي بمجرد تحرير جميع الارتباطات السحائية والوعائية.
النتائج
يتيح بروتوكول التشريح هذا عزلاً متسقاً لأدمغة الفئران الجنينية وفي مرحلة ما بعد الولادة المبكرة من E16.5–P7 مع الحفاظ على الغدة الصنوبرية في موضعها التشريحي الأصلي (الشكل 1).
تمنع الإزالة التدريجية للقحف الغضروفي، مقترنة بالتنظيف الدقيق للارتباطات السحائية والوعائية، حدوث إجهاد قص غير مقصود على الغدة الصنوبرية. علاوة على ذلك، فإن القطع المنضبط للجيب السهمي العلوي (SSS) عند نهايته المنقارية، إلى جانب الشقوق الثنائية في الجيب المستعرض (TS)، يقلل بفعالية من التوتر في الشبكة الوعائية الظهرية. يحمي هذا الإجراء الغدة الصنوبرية من الانفصال نتيجة القص أثناء استخراج الدماغ لاحقاً. ونتيجة لذلك، تظل الغدة الصنوبرية سليمة ومتصلة بخط منتصف الدماغ البيني بعد عزل الدماغ عن القبو القحفي (الشكل 2A).
لاختبار سلامة الغدة الصنوبرية المحفوظة ومدى ملاءمتها للتطبيقات اللاحقة، تم إجراء التهجين الموضعي in situ لعلامة الغدة الصنوبرية Crx، والكيمياء النسيجية المناعية لبروتين CRX9,10(الشكل 2B–D). وقد أكد ذلك هوية الغدة الصنوبرية وسلامتها الهيكلية.
تم التحقق من صحة بروتوكول التشريح عبر مراحل نمو متعددة، وتم الحفاظ على الغدة الصنوبرية سليمة في غالبية التجارب: E16.5 (N = 10)، و E18.5 (N = 15)، و P0 (N = 10)، و P7 (N = 6). وهذا يثبت أن الطريقة قوية وقابلة للتكرار بدرجة عالية للحفاظ على الغدة الصنوبرية أثناء عزل الدماغ في المراحل الجنينية وبداية فترة ما بعد الولادة (الشكل 2E).
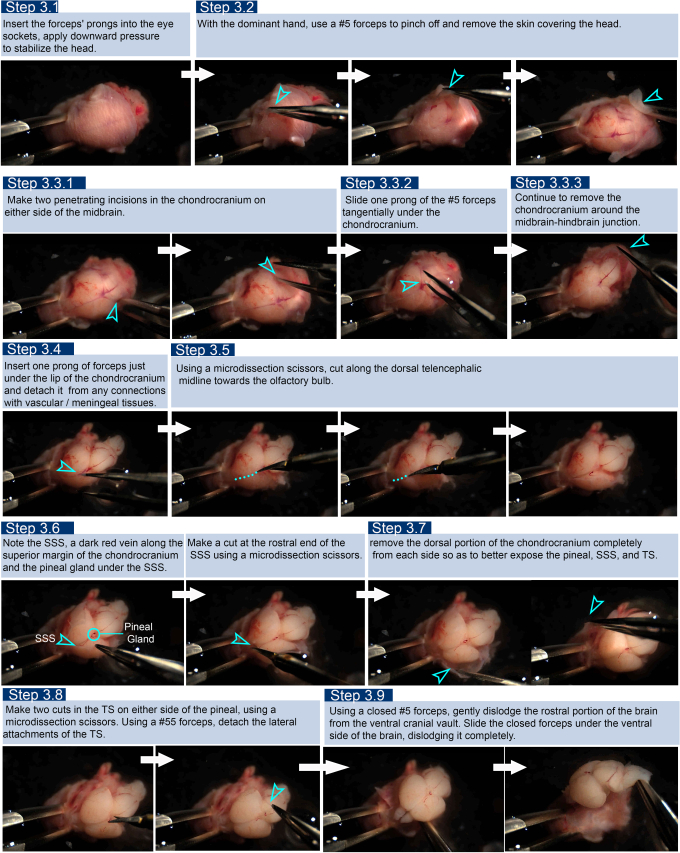
الشكل 1: لقطات من الفيديو توضح الإجراء التفصيلي لعزل دماغ فأر في المرحلة E18.5، مع الحفاظ على سلامة الغدة الصنوبرية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
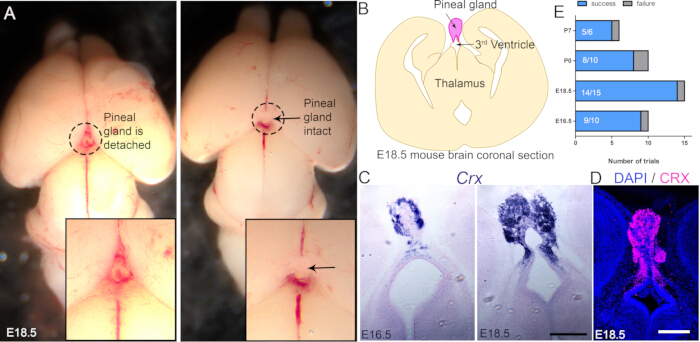
الشكل 2: نتائج ممثلة. (A) أمثلة ممثلة لدماغين فأر في اليوم الجنيني E18.5 حيث انفصلت الغدة الصنوبرية أثناء إجراء التشريح القياسي (يسار)، مقارنة بدماغ ظلت فيه الغدة الصنوبرية سليمة باستخدام الطريقة الموصوفة (يمين). (B) رسم تخطيطي لمقطع إكليلي في اليوم الجنيني E18.5 يظهر الغدة الصنوبرية باللون الوردي. (C) تهجين في الموقع In situ لـ Crx في اليومين الجنينيين E16.5 وE18.5، مما يوضح التعبير النوعي في الغدة الصنوبرية. (D) صبغ مناعي لـ CRX في اليوم الجنيني E18.5. (E) رسم بياني شريطي يوضح معدلات النجاح (عزل الدماغ مع بقاء الغدة الصنوبرية سليمة) والفشل (تضرر أو فقدان الغدة الصنوبرية) للبروتوكول في المراحل التطورية الجنينية (E16.5 وE18.5) وبعد الولادة (P0 وP7). أشرطة المقياس: 100 µm. N = 6 مكررات بيولوجية لـ A وC وD. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
تم تطوير طرق قياسية لتشريح الغدة الصنوبرية في دماغ الجنين أو الرضيع البشري، مما يساعد أخصائيي الطب الشرعي في فهم سبب متلازمة موت الرضع المفاجئ11. وقد أظهرت البروتوكولات السابقة إزالة الغدة الصنوبرية مع الأوعية الدموية السطحية والسحايا والضفيرة المشيمية12؛ ومع ذلك، لم يتم وصف طرق تضمن الاحتفاظ بشكل موثوق بغدة صنوبرية سليمة متصلة بسقف الدماغ البيني خلال مراحل تطورها المبكرة في الفئران أو القوارض الأخرى.
لقد تم تطوير جزء كبير من الأدبيات التشريحية والمنهجية الكلاسيكية التي تصف استئصال الغدة الصنوبرية وتحليلها باستخدام نماذج الجرذان13، حيث تكون الغدة أكبر وحجمها أسهل في التحديد. وفي المقابل، فإن الغدة الصنوبرية في الفأر أصغر بكثير وأكثر هشاشة، مما يجعلها عرضة بشكل خاص للفقدان أو التلف أثناء إجراءات استخراج الدماغ الروتينية. وقد حاولت بعض الدراسات معالجة هذا التحدي عن طريق تثبيت الدماغ داخل الرأس بالكامل، ومع ذلك، فإن هذا يفرض قيوداً تقنية إضافية أثناء تحضير الأنسجة لعملية التقطيع. فعلى سبيل المثال، أثناء الحماية بالتجميد في محلول سكروز بتركيز 30% بعد التثبيت في بارافورمالدهيد بتركيز 4%، قد يمارس القبو القحفي ضغطاً على أنسجة الدماغ الكامنة، مما يؤدي إلى انضغاط أو تشوه تراكيب الدماغ الأمامي الظهرية. ويمكن أن تؤثر هذه الاصطناعية على مورفولوجيا الدماغ وتعقد التحليلات التي تعتمد على التنظيم التشريحي الدقيق. علاوة على ذلك، قد لا يكون تثبيت الأنسجة مناسباً لجميع التطبيقات. لذا، هناك حاجة إلى طرق تحافظ على الغدة الصنوبرية وتبقيها متصلة بسقف الديانسيفالون دون المساس بسلامة الدماغ بشكل عام، وذلك لتسهيل الدراسات التنموية والجزيئية للغدة الصنوبرية في الفأر.
يعتبر الحفاظ الموثوق على الغدة الصنوبرية في تحضيرات الدماغ السليمة أمرًا مهمًا للعديد من التطبيقات التجريبية. تتطلب النهج النسيجية والجزيئية، مثل الكيمياء النسيجية المناعية والتهجين الموضعي in situ، الحفاظ على بنية النسيج لفحص التعبير الجيني والتنظيم الخلوي داخل الغدة. وفي الآونة الأخيرة، تعتمد التقنيات الناشئة مثل النسخ الجيني المكاني وغيرها من طرق التوصيف الجزيئي المحددة مكانيًا أيضًا على المورفولوجيا السليمة للأنسجة لرسم خرائط التعبير الجيني ضمن سياقات تشريحية محددة. وحتى الآن، لم يتم الإبلاغ عن خريطة نسخ جيني مكاني للغدة الصنوبرية في جنين الفأر. وقد يعكس هذا، جزئيًا، الصعوبة التقنية في الحفاظ على الغدة الصنوبرية سليمة أثناء عملية تشريح الدماغ التقليدية. لذلك، من المرجح أن تسهل الطرق التي تحافظ بشكل موثوق على سلامة الغدة الصنوبرية تطبيق نهج النسخ الجيني المكاني الناشئة في بيولوجيا الغدة الصنوبرية. بالإضافة إلى ذلك، نظرًا لأن الغدة الصنوبرية تمثل جزءًا صغيرًا جدًا من إجمالي أنسجة الدماغ، فإن عزل الدماغ مع بقاء الغدة الصنوبرية سليمة يسمح بخطوة إضافية لاحقة تتمثل في حصاد الغدة الصنوبرية تحديدًا، ومن شأن تجميع هذه الحصادات أن يحسن بشكل كبير من إثراء التمثيل الخاص بالغدة الصنوبرية في التحليلات الشاملة في دراسات النسخ الجيني والبروتينات.
من الضروري تثبيت الرأس جيداً باستخدام ملقط رقم 5 في اليد غير المهيمنة. ويجب الحفاظ على هذا التثبيت طوال عملية التشريح؛ وبناءً على ذلك، يجب أن تتولى اليد المهيمنة عملية تبديل الأدوات حسب الحاجة. قم بضبط الإضاءة لرؤية ارتباطات الغدة الصنوبرية بالأنسجة الوعائية السحائية التي تعلوها والتي يجب إزالتها بشكل أفضل.
الإفصاحات
يصرح جميع المؤلفين بعدم وجود تضارب في المصالح.
شكر وتقدير
نتوجه بالشكر إلى الدكتورة شيتال سوريافانشي وموظفي بيت الحيوان في معهد تاتا للأبحاث الأساسية على دعمهم المتميز. كما نشكر الدكتور سوندار ناغاناثان لسماحه السخي باستخدام مجهر Olympus MVX10 stereo macro zoom في مختبره لتسجيل فيديو الإجراء. تم تمويل هذا العمل من خلال منحة من وزارة الطاقة الذرية (DAE)، حكومة الهند، رقم تعريف المشروع RTI4003 وRTI4015 (ST)؛ ومنحة ICMR-DHR SUG، رقم GAP00303، ومنحة ANRF PMECRG رقم GAP00313 (AP).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| مجهر الحقل المضيء | Olympus | IX73 | يصلح استخدام أي مجهر بـميدان مضيء (brightfield microscope) مزود بكاميرا ملونة. |
| المجهر البؤري (Confocal microscope) | Olympus | FV3000 | يعد أي مجهر متحد البؤر أو مجهر مضيء فلوري مناسباً، وذلك بناءً على درجة الدقة المطلوبة. |
| جسم مضاد لـ CRX | Invitrogen | PA5-32182 | بروتوكول الصبغ المناعي الموصوف في دراسة .Parichha et al9. |
| مسبار CRX | مُصنّع حسب الطلب | مُصنّع حسب الطلب | بروتوكول التهجين الموضعي، باريشا وآخرون.10. |
| ملقط دقيق # 5 | إف. إس. تي (F.S.T) | 11251-23 | يمكن استبدالها بأدوات مماثلة من أي شركة. |
| ملقط دقيق # 55 | اختبار التوتر الفراغي (F.S.T) | 11255-20 | يمكن استبدالها بأدوات مماثلة من أي شركة. |
| محلول منظم من الفوسفات الملحي (PBS)، بدرجة حموضة 7.4 | Gibco | 10010023 | يمكن استبدالها بعناصر مماثلة من أي شركة. |
| طبق بتري | Corning | CLS351029 | يمكن استبدالها بعناصر مماثلة من أي شركة. |
| RNaseZap | Invitrogen | AM9782 | يعتبر محلول RNaseZap RNase Decontamination Solution محلولاً لتطهير الأسطح يعمل على تدمير إنزيمات RNase عند ملامستها. |
| مقصات زنبركية (مقصات التشريح الدقيق) | F.S.T | 15020-15 | يمكن استبدالها بأدوات مماثلة من أي شركة. |
| مجهر ستيريو زووم (Stereozoom microscope) | Nikon | SMZ745 | يمكن استخدام أي مجهر تشريحي. |
المراجع
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
إعادة الطباعة والأذونات
