تجمع هذه المراجعة الأدلة المتعلقة بمراقبة جودة الميتوكوندريا (التخليق الحيوي، والديناميكيات، والبلعمة الميتوكوندريا) عبر مراحل تكوين الحيوانات المنوية، وتربط التحولات الأيضية وإعادة التشكيل الهيكلي بالعقم عند الذكور، مع تحديد الفجوات المنهجية لتوجيه الأبحاث المستقبلية.
مقالة مراجعة
مراقبة جودة الميتوكوندريا: الحارس الأمين لعملية تكوين الحيوانات المنوية
في هذه المقالة
ملخص
الملخص
تتزايد معدلات العقم لدى الرجال في جميع أنحاء العالم. وتتطلب عملية تكوين الحيوانات المنوية طاقة عالية وترتبط ارتباطاً وثيقاً بنظام مراقبة جودة الميتوكوندريا (MQC)، بما في ذلك التكوين الحيوي، وديناميكيات الاندماج والانشطار، والبلعمة الميتوكوندريا (mitophagy). نقوم هنا بتخليص الأدلة الحالية عبر المراحل التنموية للخلايا الجرثومية، مع تسليط الضوء على التحولات النوعية لكل مرحلة من إنتاج ATP المدعوم بتحلل السكر إلى عملية التمثيل الغذائي التي يهيمن عليها الفسفرة التأكسدية (OXPHOS)، وإعادة تشكيل بنية الميتوكوندريا في غمد القطعة المتوسطة. ونلخص البيانات الجينية والوظيفية التي تشير إلى دور OPA1/MFN1-2 في اندماج الغشاء الداخلي/الخارجي، ودور DRP1/FIS1/MFF في الانشطار وتنظيم الغمد، وأدوار البلعمة الميتوكوندريا المعتمدة وغير المعتمدة على PINK1-Parkin في مراقبة جودة الميتوكوندريا، مع الإقرار بأن إزالة السيتوبلازم والحفاظ على الجسيم الطرفي أثناء تكوين الحيوانات المنوية قد يتضمنان الالتهام الذاتي العام بدلاً من البلعمة الميتوكوندريا تحديداً. ويؤدي خلل الميتوكوندريا —سواء من خلال زيادة أنواع الأكسجين التفاعلية (ROS)، أو انهيار جهد غشاء الميتوكوندريا (MMP)، أو اختلال الديناميكيات، أو عجز البلعمة الميتوكوندريا— إلى إضعاف تكوين الحيوانات المنوية ووظائفها. كما نحدد الفجوات المنهجية التي تحد من التطبيق السريري، وخاصة نقص التنميط الموحد والأدلة الجينية البشرية. إن توضيح العلاقة السببية لمراقبة جودة الميتوكوندريا وقابليتها للاستهداف الدوائي قد يدعم الأبحاث التشخيصية أو العلاجية المستقبلية في علاج العقم عند الرجال.
المقدمة
تتدهور جودة الحيوانات المنوية في جميع أنحاء العالم، وتزداد معدلات الإصابة بالعقم لدى الرجال الناتج عن رداءة جودة الحيوانات المنوية1. وقد أظهر تحليل تجميعي حديث أنه في الفترة ما بين 1973 و2011، انخفض عدد الحيوانات المنوية لدى الرجال في أمريكا الشمالية وأوروبا وأستراليا ونيوزيلندا بنسبة 50-60%2، وقد تسارع هذا الانخفاض منذ عام 20003. كما تم الإبلاغ عن هذا التدهور المتسارع في جودة الحيوانات المنوية على مستوى العالم2,3,4,5,6. وتتطلب أسباب هذا التدهور مزيداً من الدراسة واتخاذ تدابير مستهدفة لحماية الخصوبة لدى الرجال.
تحدث عملية تكوين الحيوانات المنوية في الأنابيب المنوية للخصية. وهي عملية تشبه الموجة وتتضمن تركيبات محددة من الخلايا المكونة للنطاف على طول المحور الطولي للأنابيب المنوية، مما يؤدي في النهاية إلى تكاثر الخلايا الجذعية المكونة للنطاف (SSCs) وتمايزها إلى حيوانات منوية7. ويعد تكوين الحيوانات المنوية في الثدييات أحد أكثر عمليات التمايز تعقيداً وطولاً في علم الأحياء. ففي البشر، تستغرق دورة تكوين الحيوانات المنوية الكاملة من 64 إلى 74 يوماً، بينما تستمر كل دورة ظهارية أنبوبية لمدة 16 يوماً. وتتضمن هذه العملية المعقدة تغيرات كبيرة في شكل الميتوكوندريا وعددها وتوزيعها8.
تعمل مراقبة جودة الميتوكوندريا (MQC)—وهي العمليات المنسقة لتخليق الميتوكوندريا، والاندماج، والانقسام، والبلعمة الميتوكوندريّة الانتقائية—على الحفاظ على سلامة العضيات تحت متطلبات الطاقة الحيوية المتغيرة8,9. وفي الخصية، تكون عملية مراقبة جودة الميتوكوندريا محددة بمراحل معينة وتدعم الانتقال من الخلايا المنوية التكاثرية إلى الانقسام الاختزالي وتكوين الحيوانات المنوية، وصولاً إلى تجميع غمد ميتوكوندري محكم التعبئة في القطعة المتوسطة من الحيوان المنوي9. ويوضح الشكل 1 آلية مراقبة جودة الميتوكوندريا أثناء عملية تكوين الحيوانات المنوية. ويمكن أن يؤدي خلل مكونات مراقبة جودة الميتوكوندريا إلى عيوب في تكوين الحيوانات المنوية وانخفاض الخصوبة في الكائنات النموذجية والبشر. وتدمج هذه المراجعة الرؤى الميكانيكية الحالية وتحدد الفرص التطبيقية.
مراجعة ومنظور
تكوين الحيوانات المنوية وأيض الطاقة الميتوكوندري
تتكون عملية تكوين الحيوانات المنوية من ثلاث مراحل متتالية: التكاثر الميتوزي (الانقسام الفتيلى)، والانقسام الميوزي (الانقسام الاختزالي)، وتمايز النطاف، وتتضمن تكاثر الخلايا المنوية البدائية، وتمايزها إلى خلايا منوية أولية، والانقسام الميوزي، ونضج الطلائع المنوية، ثم تحرر الحيوانات المنوية في لمعة الأنابيب المنوية. تُصنف الخلايا المنوية البدائية إلى أنواع احتياطية وأنواع متجددة؛ حيث يتم الاحتفاظ ببعض الخلايا المنوية البدائية كخلايا جذعية، بينما يشارك البعض الآخر في عملية تكوين الحيوانات المنوية من خلال التمايز. بالإضافة إلى ذلك، تخضع بعض هذه الخلايا لموت خلوي مبرمج، مثل الاستماتة. وتمر الخلايا المنوية الأولية ثنائية المجموعة الصبغية بجولتين من الانقسام الميوزي لتتمايز إلى طلائع منوية أحادية المجموعة الصبغية. وخلال مرحلة تمايز النطاف، تتوقف الطلائع المنوية المستديرة عن الانقسام وتتحول إلى طلائع منوية مستطيلة للغاية، والتي تتطور في النهاية إلى حيوانات منوية ناضجة.
تتطلب عملية تكوين الحيوانات المنوية تفاعلات منسقة بين الخلايا الجرثومية (بما في ذلك الخلايا المنوية البدائية، والخلايا المنوية، والطلائع المنوية، والحيوانات المنوية) وخلايا سيرتولي الداعمة، بالإضافة إلى الحفاظ على سلامة الحاجز الدموي الخصوي10,11. ويقوم الحاجز الدموي الخصوي، الذي يتشكل من الروابط المحكمة بين خلايا سيرتولي المتجاورة، بتقسيم الظهارة المنوية إلى مقصورتين: قاعدية وأدلمية (قريبة من اللمعة)، مما يؤدي إلى إنشاء والحفاظ على بيئة دقيقة متخصصة ضرورية لتطور الخلايا الجرثومية11,12. وبناءً على ذلك، فإن عملية تكوين الحيوانات المنوية — بدءاً من الخلايا الجذعية المنوية البدائية وصولاً إلى الحيوانات المنوية الناضجة — تحدث ضمن هذه البيئة الدقيقة الفريدة في الخصية. تعتمد عملية إنتاج الحيوانات المنوية بشكل كبير على وظيفة الميتوكوندريا13؛ فباعتبارها مركز استقلاب الطاقة في الخلايا حقيقية النواة، تُعد الميتوكوندريا ضرورية لإنتاج الحيوانات المنوية. كما يعتمد توليد الحيوانات المنوية اعتماداً كبيراً على إمدادات الطاقة ووظائف الإشارات الخاصة بالميتوكوندريا. وفي الخلايا الجرثومية النامية، لا توفر الميتوكوندريا جزيئات ATP الأساسية لتكوين الحيوانات المنوية فحسب، بل تؤثر أيضاً على هذه العملية من خلال المشاركة في الإشارات داخل الخلوية، وتنظيم الدورة الخلوية، والموت الخلوي المبرمج13. أما في خلايا ليدج، فتلعب الميتوكوندريا دوراً حاسماً في إنتاج الهرمونات الستيرويدية، حيث يكون تخليق ATP الميتوكوندري ضرورياً لإنتاج التستوستيرون في هذه الخلايا الخلالية الخصوية14. بالإضافة إلى ذلك، وباعتبارها العضية الوحيدة التي تمتلك DNA مستقلاً، يرتبط DNA الميتوكوندريا ارتباطاً وثيقاً بجودة الحيوانات المنوية. لذا، فإن فهم حالة الميتوكوندريا وآليات تنظيمها أمر مهم للكشف عن عملية تكوين الحيوانات المنوية والحفاظ على الخصوبة لدى الذكور.
يعد استقلاب الطاقة أمراً بالغ الأهمية لعملية تكوين الحيوانات المنوية، والتي تتطلب كمية كبيرة من ATP. ويتم إنتاج ATP عبر مسارين رئيسيين هما الفسفرة التأكسدية الميتوكوندريا (OXPHOS) وتحلل السكر. ويعتمد إمداد ATP على المرحلة؛ فبينما تزداد أهمية OXPHOS خلال الانقسام الاختزالي وتكوين القطعة المتوسطة، يساهم تحلل السكر بشكل كبير في إنتاج ATP، خاصة في الحيوانات المنوية الناضجة. كما يدعم تحلل السكر نضج الحيوانات المنوية وحركتها ومرورها عبر الجهاز التناسلي الأنثوي من خلال توفير إمداد طاقة مرن وسريع.
ومع ذلك، تكون الميتوكوندريا في الخلايا المنوية البدائية والخلايا المنوية الأولية صغيرة نسبياً وتظهر نشاطاً محدوداً في الفسفرة التأكسدية (OXPHOS). ومع تقدم عملية تكوين الحيوانات المنوية إلى مراحل لاحقة، مثل الخلايا المنوية، والطلائع المنوية، والحيوانات المنوية، تخضع الميتوكوندريا لإعادة تشكيل ويصبح نشاط الفسفرة التأكسدية فيها أكثر كفاءة وتركيزاً من الناحية المكانية. بالإضافة إلى ذلك، تختلف الركائز المتاحة عبر المراحل المختلفة بسبب وجود الحاجز الدموي الخصوي. حيث تستطيع الخلايا المنوية البدائية، المستقرة في الحجرة القاعدية للظهارة المنوية، الوصول إلى الجلوكوز الجاري في الدم وإنتاج الطاقة من خلال تحلل السكر. وفي المقابل، تنفصل الخلايا المنوية والطلائع المنوية الموجودة في الحجرة اللمعية عن الدم والنسيج الخلالي بواسطة الحاجز الدموي الخصوي، وتعتمد على خلايا Sertoli لامتصاص الجلوكوز عبر ناقلات الجلوكوز (GLUTs)، وتحويله إلى بيروفات عن طريق تحلل السكر. ثم يتم تحويل البيروفات إلى لاكتات بواسطة إنزيم نزع هيدروجين اللاكتات (LDH). ويُنقل اللاكتات إلى الخلايا المنوية عبر ناقلات أحادية الكربوكسيلات (MCTs)، حيث يتم تحويله مرة أخرى إلى بيروفات بواسطة LDH، والذي يمكن تحويله بعد ذلك إلى acetyl-CoA بواسطة إنزيم نزع هيدروجين البيروفات (PDH) للدخول في دورة حمض ثلاثي الكربوكسيل (TCA). وأخيراً، يُنقل البيروفات إلى الميتوكوندريا عبر ناقل البيروفات الميتوكوندري لتعزيز الفسفرة التأكسدية (OXPHOS).
ضعف عملية تكوين الحيوانات المنوية الناتج عن الخلل الوظيفي للميتوكوندريا
أثناء عملية تحرر الحيوانات المنوية، تتحرر الحيوانات المنوية الناضجة من خلايا سيرتولي إلى تجويف الأنابيب المنوية، ثم تُنقل بعد ذلك إلى البربخ. وتتطلب هذه العملية إمداداً طاقياً كبيراً من المتقدرات (الميتوكوندريا). وعندما تضعف وظائف المتقدرات، تتعرقل عملية تكوين الحيوانات المنوية. وتشمل العلامات الرئيسية لخلل وظائف المتقدرات الإنتاج المفرط لأنواع الأكسجين التفاعلية (ROS)، والتغيرات في جهد غشاء المتقدرات (MMP)، والاختلال في ديناميكيات انشطار وانصهار المتقدرات، وضعف التخليق الحيوي للمتقدرات، وعجز عملية البلعمة الذاتية للمتقدرات، واضطراب التوازن الداخلي لأيونات الكالسيوم.
ترافق عملية إنتاج ATP بواسطة الميتوكوندريا من خلال الفسفرة التأكسدية (OXPHOS) إنتاج لأنواع الأكسجين التفاعلية (ROS). وتعد الميتوكوندريا المصدر الرئيسي لـ ROS، والتي تتولد بشكل أساسي عند المعقدات التنفسية I و III في سلسلة نقل الإلكترونات الميتوكوندرية (ETC)15. وفي ظل الظروف الفسيولوجية الطبيعية، تشارك مستويات مناسبة من ROS في مسارات الإشارات التي تنظم عملية تكوين الحيوانات المنوية. ومع ذلك، يمكن أن تؤدي المستويات المفرطة من ROS إلى اختلال التوازن التأكسدي، مما يسبب إجهاداً تأكسدياً ويضعف عملية تكوين الحيوانات المنوية. لذا، فإن التوازن بين استقلاب الطاقة الميتوكوندري وإنتاج ROS يعد عاملاً رئيسياً في ضمان عملية تكوين الحيوانات المنوية.
تتطلب عملية الفسفرة التأكسدية (OXPHOS) الميتوكوندرية الفعالة دخول ركائز الكربون التنفسية (مثل pyruvate والأحماض الدهنية) عبر الغشاء الميتوكوندري الخارجي إلى الحيز بين الغشائي. ثم تُنقل هذه الركائز إلى الماتريكس (المادة الخلالية) عبر نواقل تقع في الغشاء الميتوكوندري الداخلي، حيث تشارك في دورة TCA. وفي دورة TCA، تخضع ركائز الكربون هذه لتكسير تأكسدي، مما ينتج عنه nicotinamide adenine dinucleotide (NADH) و flavin adenine dinucleotide (FADH2). وتقوم هذه النواتج بمنح الإلكترونات لسلسلة نقل الإلكترونات (ETC) وتحفيز عملية OXPHOS لتخليق ATP من ADP والفوسفات غير العضوي (Pi). ويمكن أن تؤدي الانقطاعات في مسارات دورة TCA أو سلسلة ETC إلى ضعف إنتاج الحيوانات المنوية16. وقد ثبت أن جهد الغشاء الميتوكوندري (MMP)، كمؤشر لحالة الطاقة الخلوية ووظيفة الميتوكوندريا، يرتبط بحركة الحيوانات المنوية17 والقدرة الإخصابية الشاملة18.
في ظل الإجهاد الميتوكوندري، يمكن أن يؤدي الانشطار إلى فصل قطاعات الميتوكوندريا التالفة، بينما يمكن للاندماج أن يعزز خلط المحتويات والتكامل الوظيفي. ومن ثم، قد يتم تحلل الميتوكوندريا التالفة أو الزائدة وإعادة تدويرها من خلال عملية الميتوفاجي (الالتهام الذاتي للميتوكوندريا). وتشكل عمليات التخليق الحيوي للميتوكوندريا، والانشطار، والاندماج، والميتوفاجي مجتمعةً نظام مراقبة جودة الميتوكوندريا (MQC)، الذي يدعم وظيفة الميتوكوندريا وإعادة تشكيلها19.
تتضمن عملية تكوين الحيوانات المنوية تمايز الخلايا المنوية البدئية إلى حيوانات منوية، وهو ما لا يؤدي إلى تغيرات ملحوظة في مورفولوجيا الخلايا فحسب، بل يتطلب أيضاً دعم وتنظيم عملية التمثيل الغذائي للطاقة. وباعتبار الميتوكوندريا مراكز الطاقة في الخلايا، فإنها تلعب دوراً حاسماً في جوانب رئيسية من تكوين الحيوانات المنوية، بما في ذلك إمدادات الطاقة، ونقل الإشارات، والموت الخلوي المبرمج. وتتفاوت المتطلبات الأيضية للخلايا الجرثومية خلال مراحل النمو المختلفة في عملية تكوين الحيوانات المنوية. كما يطرأ على عدد الميتوكوندريا ومورفولوجيتها تغيرات كبيرة خلال هذه العملية؛ ففي أثناء تكوين الحيوانات المنوية، يتم التخلص من العديد من الميتوكوندريا، بينما يتم تنظيم الميتوكوندريا المتبقية في القطعة المتوسطة من الحيوان المنوي لتكوين غمد ميتوكوندري حول المحور المحوري وبنيات السوط المرتبطة به. ولذلك، تخضع الميتوكوندريا في مختلف خلايا الخصية باستمرار لعمليات الاندماج والانقسام أثناء تكوين الحيوانات المنوية، مما يتطلب آلية دقيقة وفعالة للتحكم في جودة الميتوكوندريا (MQC) لضمان وظيفتها الطبيعية ودعم متطلبات الطاقة العالية لهذه العملية. ومع إنتاج الحيوانات المنوية، تخضع كل من مورفولوجيا الميتوكوندريا وعددها لتغيرات كبيرة، ويلعب نظام MQC دوراً حاسماً في هذه العملية. وقد وردت البروتينات المستهدفة الرئيسية المشاركة في MQC في الجدول 1.
تكوين الحيوانات المنوية وديناميكيات الميتوكوندريا
الميتوكوندريا هي عضيات ديناميكية للغاية، حيث يتم إعادة تشكيل مورفولوجيتها وحجمها وتوزيعها داخل الخلية باستمرار من خلال عمليات الاندماج والانشطار المنسقة، وهي عملية تُسمى مجتمعةً الديناميكيات الميتوكوندرية. وفي الظروف الفسيولوجية الطبيعية، يوجد الاندماج والانشطار في حالة توازن ديناميكي يحافظ على الاستتباب الميتوكوندري، ويسهل التكامل الوظيفي، ويضمن الوراثة الميتوكوندرية السليمة أثناء انقسام الخلايا. إن اختلال هذا التوازن -سواء عن طريق الاستئصال الجيني، أو عيوب التعديل ما بعد الترجمة، أو الإجهاد المرضي- يؤدي إلى ضعف الوظيفة الميتوكوندرية، ويضعف إنتاج الطاقة، ويعيق في النهاية عملية تكوين الحيوانات المنوية. ويعد التنظيم الدقيق للديناميكيات الميتوكوندرية أمراً بالغ الأهمية خاصة في الخلايا الجرثومية، حيث يتطلب تكوين الحيوانات المنوية تحولات أيضية جذرية وإعادة تشكيل مورفولوجي واسع النطاق يستلزم تكيفاً لبنية الميتوكوندريا ونشاطها بما يتناسب مع كل مرحلة.
تتم عملية الاندماج الميتوكوندري بوساطة MFN1 و MFN2 على الغشاء الميتوكوندري الخارجي و OPA1 على الغشاء الداخلي، مما يسهل خلط المحتويات، والتكامل الوظيفي، والحفاظ على سلامة الحمض النووي الميتوكوندري. ولا يعد الاندماج مجرد استجابة دفاعية، بل هو آلية تعتمد على السياق تدعم الوراثة الميتوكوندرية والتكيف الأيضي أثناء تمايز الخلايا الجرثومية. وخلال تمايز الخلايا المنوية البدائية، يزداد تعبير MFN، ويؤدي فقدان أي من MFN1 أو MFN2 إلى أكسدة الحمض النووي وموت الخلايا المبرمج في الخلايا المنوية البدائية والخلايا المنوية، مما يؤدي إلى العقم عند الذكور20,21. وتسبب طفرات MFN1 ضموراً في الخصية لدى الفئران، مع انخفاض ملحوظ في الخلايا المنوية وفشل في إنتاج الحيوانات المنوية، بينما تظل الخلايا المنوية البدائية غير المتمايزة غير متأثرة، مما يشير إلى أن MFN1 مطلوب للتقدم في الانقسام الاختزالي20. وفي المقابل، ينظم MFN2 وظائف كل من الميتوكوندريا والشبكة الإندوبلازمية، ويلعب دوراً متميزاً في عملية تكوين الحيوانات المنوية21.
يتم تنظيم انشطار الميتوكوندريا بواسطة البروتين DRP1، الذي يتم استدعاؤه إلى الغشاء الميتوكوندري الخارجي عبر بروتينات مهايئة تشمل FIS1 وMFF وMID49 وMID51. وبمجرد استدعائه، يتجمع DRP1 في شكل قسيمات حلقية تعمل على تضييق وتقسيم الميتوكوندريا بطريقة تعتمد على GTP. تتضمن هذه العملية ثلاث خطوات رئيسية: تنشيط DRP1 عن طريق الفسفرة، والاستدعاء إلى الغشاء الخارجي من خلال التفاعلات مع FIS1 وMFF وMID49 وMID51، والتجمع في بنية حلقية تطوق الميتوكوندريا وتضغطها، مع استهلاك GTP وإنتاج عضيتين منفصلتين. ولا يعد الانشطار مجرد آلية للتخلص من الميتوكوندريا منزوعة الاستقطاب أو لتلبية زيادة الطلب على الطاقة؛ بل هو عملية منسقة تنظم توزيع الميتوكوندريا، وفصل المكونات التالفة، والتوريث أثناء انقسام الخلايا، وإعادة تشكيل بنية الميتوكوندريا. وتكون الفئران التي تفتقر إلى DRP1 ميتة في المرحلة الجنينية22,23؛ بينما تظهر الفئران التي تعاني من نقص في MFF انخفاضاً في الخصوبة وعدد الحيوانات المنوية، مما يوفر نموذجاً قيماً لدراسة انشطار الميتوكوندريا في تطور الخلايا الجرثومية الذكرية24. ويعد انشطار الميتوكوندريا ضرورياً للتكوين السليم للغمد الميتوكوندري أثناء عملية تكوين الحيوانات المنوية.
تعد عملية تكوين الحيوانات المنوية عملية مجهدة من الناحية الطاقية، حيث تعتمد بشكل أساسي على تحلل السكر في الخلايا النطفية الأم، وعلى الفسفرة التأكسدية (OXPHOS) في الخلايا النطفية والخلايا النطفية الناضجة. وتعتبر الفسفرة التأكسدية (OXPHOS) بالغة الأهمية خاصة أثناء الانقسام الاختزالي، وتعتمد كفاءتها على سلامة ديناميكيات الميتوكوندريا25,26. وعقب الانقسام الاختزالي، يقوم بروتين MFF وبروتينات الانشطار الأخرى بتنظيم انشطار الميتوكوندريا والمشاركة في تكوين الغمد الميتوكوندري للحيوان المنوي24. وخلال مرحلة تمايز الخلايا النطفية، يتم الاحتفاظ ببعض الميتوكوندريا انتقائياً وإعادة تشكيلها لتكوين الغمد، بينما يتم التخلص من الميتوكوندريا الزائدة والمكونات السيتوبلازمية عبر عملية الالتهام الذاتي27. وقد تمثل بروتينات مثل OPA1 وDRP1 وMFF أهدافاً بحثية مرشحة لتعزيز وظيفة الحيوانات المنوية، إلا أن أهميتها العلاجية تتطلب مزيداً من التحقق. ومن شأن إجراء المزيد من الاستقصاءات حول مراقبة جودة الميتوكوندريا (MQC) في عملية تكوين الحيوانات المنوية البشرية أن يسهل الأبحاث التشخيصية أو العلاجية المستقبلية في حالات عقم الرجال.
تكوّن الحيوانات المنوية والبلعمة الذاتية للمتقدرات
تلعب عملية الميتوفاجي (Mitophagy) دوراً حاسماً في عملية تكوين الحيوانات المنوية28. تتضمن الميتوفاجي بشكل أساسي ابتلاع الميتوكوندريا التالفة بواسطة الأجسام البلعمية الذاتية (autophagosomes). ثم تندمج الأجسام البلعمية الذاتية التي تحتوي على الميتوكوندريا التالفة مع الليزوزومات، ويتم تحلل الميتوكوندريا من خلال العمل الليزوزومي، مما يؤدي إلى إزالة الميتوكوندريا التالفة وتحقيق مراقبة الجودة. ويعد مسار PINK1/Parkin هو المسار التقليدي للبلعمة الذاتية للميتوكوندريا، كما تم وصف مسارات أخرى مستقلة عن PINK1/Parkin29.
تساعد عملية الالتهام الذاتي (Autophagy) في الحفاظ على سلامة الجسيم الطرفي (acrosome)، واستقطاب الطلائع المنوية (spermatid polarization)، وتحلل المكونات السيتوبلازمية أثناء عملية تكوين الحيوانات المنوية، على الرغم من أن هذه العمليات تعكس الالتهام الذاتي العام بدلاً من الالتهام الميتوكوندري الانتقائي (selective mitophagy) ما لم يتم إثبات التخلص من الميتوكوندريا بشكل محدد. وقد وجدت الدراسات أن الالتهام الميتوكوندري يرتبط ارتباطاً وثيقاً بديناميكيات الميتوكوندريا، وقد يسهل انشطار الميتوكوندريا عملية الالتهام الميتوكوندري لإزالة الميتوكوندريا الزائدة أو التالفة30. ويشارك البروتين FIS1، رغم كونه بروتيناً مسؤولاً عن انشطار الميتوكوندريا، في عملية الالتهام الميتوكوندري أثناء تكوين الحيوانات المنوية31. كما يشارك RAB7A في تكوين الجسيمات الالتهامية الميتوكوندرية (mitophagosome) ونضج الجسيمات الالتهامية (autophagosome)32. ويتفاعل FIS1 مع البروتين TBC1D15، وهو بروتين منشط لإنزيم GTPase في الميتوكوندريا33,34. وينظم TBC1D15 نشاط RAB7A، الذي يشارك في اندماج الحويصلات والجسيمات الحالة (lysosomes) ونضج الجسيمات الالتهامية34,35. وعندما يتم تثبيط FIS1، يمكن أن يظل RAB7A نشطاً على سطح الميتوكوندريا، مما يؤدي إلى خلل في نمو غشاء الجسيم الالتهامي وتكوين الأنابيب؛ ويمكن ملاحظة تجمع LC3 بواسطة المجهر الضوئي35. ويمكن أن يحدث الالتهام الميتوكوندري أيضاً بشكل مستقل عن انشطار الميتوكوندريا بوساطة DRP1، لذا لا ينبغي اعتبار الانشطار شرطاً إلزامياً للتخلص من الميتوكوندريا35.
أثناء عملية تكوين الحيوانات المنوية (spermiogenesis)، يتم تجريد الطلائع المنوية (spermatids) من المكونات الخلوية الزائدة، وقد وجدت الدراسات أن الأجسام البلعمية الذاتية (autophagosomes) تكون أكثر وفرة في الطلائع المنوية36. وقد تم ربط جين الالتهام الذاتي الأساسي Atg7 باستقطاب الطلائع المنوية وإزالة السيتوبلازم أثناء عملية تكوين النطاف (spermatogenesis)؛ ومع ذلك، يبدو أن أنواع الخلايا الجرثومية المبكرة أقل تأثراً في هذا السياق27,36. بالإضافة إلى ذلك، يتم تعزيز الالتهام الميتوكوندري (mitophagy) في نماذج الخصية التالفة، بما في ذلك خلايا ليدج (Leydig cells)29، والخلايا الجذعية/السلفية للنطاف (spermatogonial stem cells/progenitors)37,38، وخلايا سيرتولي (Sertoli cells)39، وخصية الجرذ غير الناضجة المعرضة للمواد السامة40. وفي عملية تكوين النطاف، يرتبط الالتهام الذاتي للميتوكوندريا بموت الخلايا المبرمج (apoptosis) وأنماط أخرى من موت الخلايا المبرمج، مما يؤثر بالتالي على إنتاج الحيوانات المنوية في الخصية41,42.
السياق البيبليومتري
أُجري تحليل ببليومتري مركز لمجموعة Web of Science Core Collection من عام 1970 إلى عام 2023 باستخدام مصطلحات البحث “spermatogenesis” و“MQC”؛ وتم استبعاد الدراسات غير الثديية والسجلات غير ذات الصلة، واستُخدم برنامج VOSviewer 1.6.20 للتصور المرئي43. وبعد الفرز، تم الاحتفاظ بـ 1,019 مقالاً من 1,217 مؤسسة في 66 دولة و5,705 مؤلفين. وقد ازدادت المنشورات بشكل مطرد (الشكل 2A). وساهمت الولايات المتحدة والصين بأكبر عدد من المقالات (212 و196، على التوالي)، وسجلت الولايات المتحدة أعلى عدد من الاستشهادات (12,295؛ الشكل 2B). وتلخص الشبكات المؤسسية وشبكات المؤلفين في الشكل 2C,D.
أشار تحليل التواجد المشترك للكلمات المفتاحية (التكرار > 7) إلى التركيز على حركة الحيوانات المنوية، والإجهاد التأكسدي، والموت الخلوي المبرمج/الاستماتة، وتلف الحمض النووي DNA، وبيروكسيد الدهون، وجودة الحيوانات المنوية (الشكل 3). وتدعم هذه الأنماط البيبليومترية المراجعة الآلية ولكنها لا تحل محلها: حيث يتركز المجال حول التلف التأكسدي ونتائج الحركة، بينما تظل الأدلة البشرية المباشرة التي تربط مسارات مراقبة جودة الحيوانات المنوية (MQC) الخاصة بمراحل معينة بالعقم محدودة.
الاستنتاجات
مع تقدم التكنولوجيا الحيوية، انتقلت الأبحاث المتعلقة بخصوبة الذكور من الوصف المورفولوجي والحركية نحو الآليات الجزيئية والخلوية لتكوين الحيوانات المنوية. وتلعب الميتوكوندريا دوراً مركزياً في هذه العملية؛ حيث تقوم بتوليد ATP، ودعم إعادة التشكيل أثناء الانقسام الاختزالي وتكون الحيوانات المنوية، كما أنها شديدة الحساسية للإصابات التأكسدية والبيئية44. وللحفاظ على وظائفها في ظل هذا الإجهاد، تعتمد الميتوكوندريا على MQC، التي تدمج بين التخليق الحيوي، وديناميكيات الاندماج والانشطار، والبلعمة الميتوكوندريا (mitophagy). ويؤدي اختلال هذه المسارات إلى إضعاف تطور الخلايا الجرثومية، وبنية القطعة المتوسطة للحيوان المنوي، وفي النهاية الخصوبة. وفي الختام، تدعم الأدلة المتاحة نموذجاً محدداً بمراحل معينة، تساعد فيه ديناميكيات الميتوكوندريا والبلعمة الميتوكوندريا في تنسيق إنتاج الطاقة، وإعادة تشكيل العضيات، وإزالة المكونات التالفة أثناء تكوين الحيوانات المنوية. ومع ذلك، لا تزال الأدلة البشرية المباشرة والتنميط الظاهري الموحد محدودة، لذا يجب النظر إلى البروتينات المرتبطة بـ MQC كأهداف بحثية مرشحة تتطلب مزيداً من التحقق بدلاً من كونها أهدافاً علاجية مثبتة.
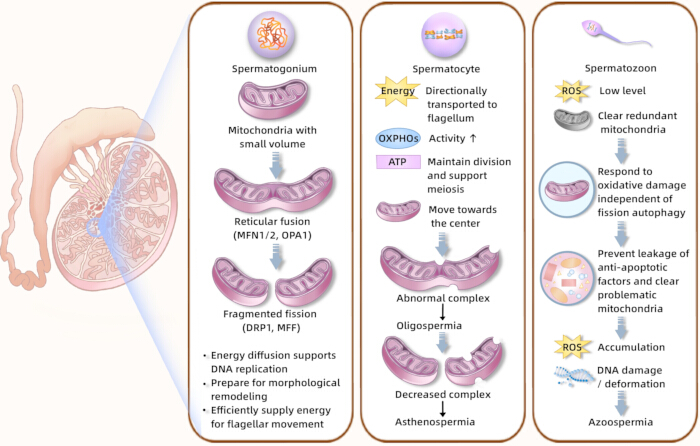
الشكل 1. آلية مراقبة جودة الميتوكوندريا أثناء تكوين الحيوانات المنوية. استقلاب الطاقة وإعادة تشكيل الميتوكوندريا وفقاً للمراحل في عملية تكوين الحيوانات المنوية. يوضح المخطط الاقتران الاستقلابي بين خلايا سيرتولي والخلايا الجرثومية، وناقلات الغلوكوز، وناقلات أحادي الكربوكسيلات، وإنتاج ATP، والانتقال من الاستقلاب المدعوم بتحلل السكر إلى الفسفرة التأكسدية أثناء الانقسام الاختزالي وتكون الحيوانات المنوية، وتلف الميتوكوندريا المرتبط بأنواع الأكسجين التفاعلية. الاختصارات: ATP = أدينوسين ثلاثي الفوسفات؛ OXPHOS = الفسفرة التأكسدية؛ ROS = أنواع الأكسجين التفاعلية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
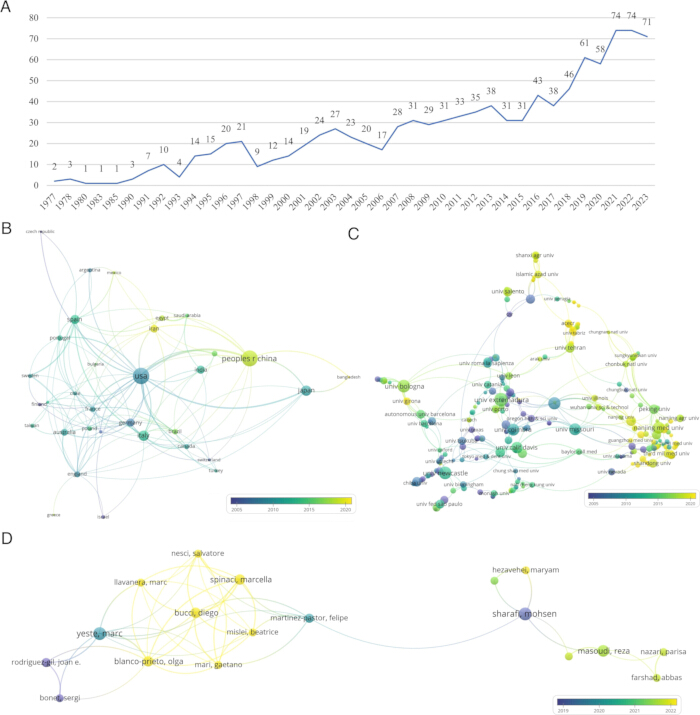
الشكل 2. المنشورات الوطنية والمؤسسية ومنشورات المؤلفين والتحليل التعاوني. (A) العدد السنوي للمنشورات في مجال تكوين الحيوانات المنوية و MQC. (B) خريطة التوزيع الزمني للمنشورات التعاونية الدولية في مجال تكوين الحيوانات المنوية و MQC. (C) خريطة التوزيع الزمني للتعاون المؤسسي في مجال تكوين الحيوانات المنوية و MQC. (D) خريطة التوزيع الزمني لمنشورات المؤلفين في مجال تكوين الحيوانات المنوية و MQC. تشير العقد إلى عدد المنشورات؛ ويشير لون العقدة إلى وقت النشر من الأقدم إلى الأحدث؛ وتمثل الخطوط علاقات التعاون، حيث تشير الخطوط الأكثر سمكاً إلى تعاون أوثق. الاختصار: MQC = مراقبة جودة الميتوكوندريا. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
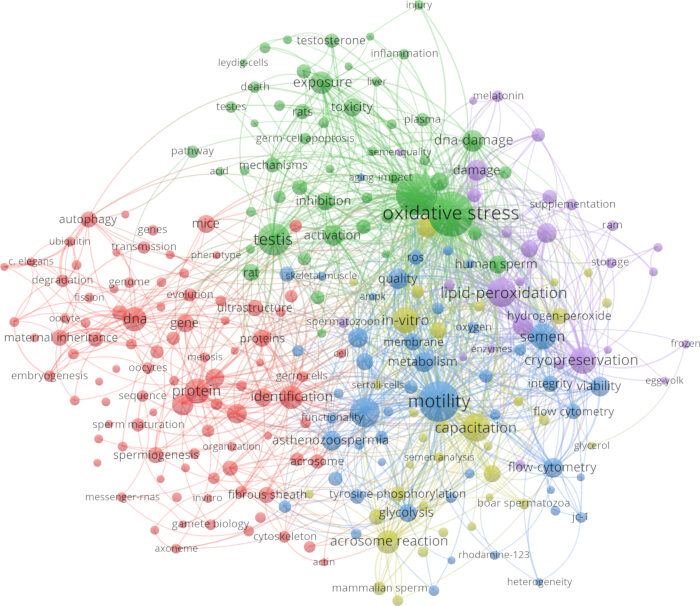
الشكل 3. مخطط التكرار المشترك للكلمات المفتاحية عالية التكرار. تمثل العقد الكلمات المفتاحية عالية التكرار؛ ويعبر حجم العقدة عن التكرار؛ ويشير لون العقدة إلى التجميع، حيث يشير اللون نفسه إلى موضوعات أكثر ارتباطاً؛ وتمثل الخطوط العلاقات بين الكلمات المفتاحية، حيث تشير الخطوط الأكثر سمكاً إلى علاقات أوثق. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| عملية مراقبة الجودة المادية (MQC) | البروتين المستهدف |
| الاندماج الميتوكوندري | ضمور العصب البصري 1 (OPA1) |
| ميتوفوسين 1 (MFN1) | |
| ميتوفوسين 2 (MFN2) | |
| الانشطار الميتوكوندري | البروتين 1 المرتبط بالداينامين (DRP1) |
| بروتين انشطار الميتوكوندريا 1 (FIS1) | |
| عامل انشطار الميتوكوندريا (MFF) | |
| البلعمة الذاتية للميتوكوندريا (Mitophagy) | الكيناز المفترض 1 المحفز بواسطة PTEN (PINK1) |
| إنزيم يوبيكويتين-بروتين ليغاز باركين (E3 ubiquitin-protein ligase Parkin) |
الجدول 1: البروتينات المستهدفة الرئيسية في مراقبة جودة الميتوكوندريا. يسرد الجدول بروتينات ممثلة تشارك في اندماج الميتوكوندريا، وانشطار الميتوكوندريا، والبلعمة الميتوكوندريّة أثناء عملية تكوين الحيوانات المنوية.
الإفصاحات
لا يوجد لدى المؤلفين أي تضارب في المصالح للإفصاح عنه.
شكر وتقدير
تم دعم هذا العمل من قبل مشروع مؤسسة نينغشيا للعلوم الطبيعية (2025AAC030481, 2024AAC03715)، والمؤسسة الوطنية للعلوم الطبيعية في الصين (82560939, 82505601)، وبرنامج نينغشيا الرئيسي للبحث والتطوير (2025FRG05005, 2025BEG2008)، ومؤسسة بكين للعلوم الطبيعية (7254520)، ومؤسسة الصين لعلوم ما بعد الدكتوراه (2025T181076)، وبرنامج رعاية العلماء النخبة الشباب من قبل الجمعية الصينية للعلوم والتكنولوجيا (YESS20240193)، وبرنامج دعم المواهب الشابة التابع للجمعية الصينية للطب الصيني (CACM-2024-QNRC2-B17)، ومشروع بناء التخصصات الرئيسية عالية المستوى للطب الصيني التقليدي من قبل الإدارة الوطنية للطب الصيني التقليدي (zyyzdxk-2023238).
المراجع
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.