تلخص هذه المراجعة دور مثيلة الحمض النووي (DNA methylation) في التنظيم المناعي ورفض الأعضاء المزروعة. تنظم مثيلة الحمض النووي تطور الخلايا المناعية وتمايزها، وتعدل وظائف الخلايا المناعية، وقد تعمل كمؤشر حيوي وهدف علاجي لتحسين بقاء الطعم المزروع.
مقالة مراجعة
التنظيم المناعي لمثيلة الحمض النووي وتداعياته في رفض الطعوم الخيفية
34 مشاهدة
⸱
سبتمبر 11, 2026
في هذه المقالة
ملخص
الملخص
لا يزال رفض трансplant (الزرع) يمثل عائقاً رئيسياً أمام بقاء الطعم لفترات طويلة، وهو مدفوع بتفاعلات معقدة بين الاستجابات المناعية والآليات التنظيمية الجزيئية. ويلعب مثيلة الحمض النووي (DNA methylation)، وهي تعديل فوق جيني رئيسي، دوراً هاماً في تنظيم تطور الخلايا المناعية وتمايزها ونضجها ووظيفتها. ويمكن لمثيلة الحمض النووي غير الطبيعية أن تغير تعبير الجينات المرتبطة بالمناعة وتؤثر على طبيعة وكثافة الاستجابات المناعية. وفي عمليات الزرع، قد تؤثر هذه التغيرات على الخلايا التائية (T cells)، والخلايا البائية (B cells)، والخلايا المناعية الفطرية المشاركة في رفض الطعم. كما تساهم مثيلة الحمض النووي في تنظيم مسارات الإشارات المرتبطة بالتنشيط المناعي، والتحمل، والاستجابات الالتهابية. وبالتالي، قد تؤثر التغيرات في أنماط المثيلة على كل من تطور عملية الرفض والحفاظ على وظيفة الطعم. تلخص هذه المراجعة المعرفة الحالية حول مثيلة الحمض النووي في التنظيم المناعي وتفحص آثارها على رفض الزرع، مع تركيز خاص على تطور الغدة الزعترية، والخلايا التائية المساعدة والسامة، والخلايا التائية التنظيمية، والخلايا البائية، والخلايا المناعية الفطرية، ومسارات الإشارات. كما تتناول الأهمية المحتملة لمثيلة الحمض النووي كعلامة حيوية وهدف علاجي في عمليات الزرع. إن فهم هذه الآليات فوق الجينية قد يدعم تطوير نهج أكثر دقة لتقييم مخاطر الرفض، وتعديل الاستجابات المناعية، وتحسين نتائج الطعم على المدى الطويل بعد زراعة الأعضاء الصلبة.
المقدمة
علم المناعة هو التخصص العلمي المعني بتركيب ووظيفة الجهاز المناعي، بما في ذلك الآليات التي تكمن وراء الاستجابات المناعية والحفاظ على التوازن الداخلي بعد التعرف على مكونات الذات والمكونات غير الذاتية. كما يشمل هذا المجال العمليات المرضية الناجمة عن خلل في تنظيم الوظيفة المناعية. يؤدي الجهاز المناعي ثلاث وظائف أساسية هي: الدفاع، والمراقبة، والتوازن الداخلي. وتعمل هذه الوظائف معاً على منع غزو الممرضات الخارجية والمواد الضارة، والتخلص من المكونات غير الذاتية داخل الجسم، والحفاظ على بيئة مناعية داخلية مستقرة. وبناءً على خصائص الاستجابات المناعية، تُصنف المناعة إلى مناعة فطرية أو مناعة تكيفية. توفر المناعة الفطرية استجابة سريعة وغير متخصصة للممرضات الغريبة، بينما توفر المناعة التكيفية استجابة عالية التخصص موجهة ضد مستضدات معينة1,2. وأثناء الاستجابة المناعية، تعمل عوامل خارجية وداخلية على تنظيم تعبير الجينات المرتبطة بالوظيفة المناعية. ويتضمن هذا التنظيم آليات وراثية كلاسيكية بالإضافة إلى تعديلات فوق جينية، مما يشكل شبكة تنظيم نسخية معقدة وديناميكية3.
تركز الوراثة التقليدية على التغيرات في وظيفة الجينات الناتجة عن تبدلات في تسلسلات DNA، بينما تدرس علم فوق الجينات (epigenetics) التغيرات القابلة للعكس والوراثية في التعبير الجيني التي تحدث دون تعديل تسلسل DNA الأساسي. ويمكن للمؤثرات البيئية، بما في ذلك العدوى والتعرض للمواد الكيميائية والمستحضرات الصيدلانية، بالإضافة إلى العوامل الداخلية مثل السيتوكينات والهرمونات، أن تغير المشهد فوق الجيني للجينات. وتنظم هذه التغييرات التعبير الجيني وتؤدي في النهاية إلى تشكيل الأنماط الظاهرية الخلوية والوظائف البيولوجية. وتشمل الآليات الرئيسية لفوق الجينات التي تتحكم في التعبير الجيني مثيلة DNA، وتعديل الهيستون، وإعادة تشكيل الكروماتين، والتنظيم بوساطة الحمض النووي الريبي غير المشفر (non-coding RNA). وخلال مراحل التطور الجنيني المبكرة، يتم محو علامات مثيلة DNA بشكل شبه كامل، ثم يُعاد تأسيسها لاحقاً أثناء التمايز4,5. ويعد الإزالة الدقيقة وإعادة تأسيس هذه التعديلات فوق الجينية أمراً ضرورياً للتطور الخلوي الطبيعي والتمايز والنضج. وفي المقابل، يمكن أن تؤدي التغيرات فوق الجينية الشاذة إلى تعطيل وظيفة الجينات والمساهمة في ظهور المرض وتطوره6. كما تتغير أنماط مثيلة DNA ديناميكياً خلال تطور وتمايز الخلايا التائية (T cells) والخلايا البائية (B cells)7,8. وتسلط هذه النتائج الضوء على الدور الحاسم للتنظيم فوق الجيني في توجيه تمايز الخلايا الجذعية المكونة للدم في نخاع العظم إلى سلالات متنوعة من الخلايا المناعية. وتنظم تعديلات الهيستون تمايز والمرونة الوظيفية للمونوسيتات/البلعميات والخلايا التائية المساعدة9,10,11,12,13,14 وتؤثر على مسارات تأشير رئيسية، بما في ذلك مسارات المستقبلات الشبيهة بتول (Toll-like receptor)15,16. ويعبر عن مُعيد تشكيل الكروماتين Mi-2beta بشكل كبير في الخلايا الثيموسية، وهو ينظم بشكل مباشر التعبير عن جين CD4 وتطور الخلايا التائية17. كما تعمل الأحماض النووية الريبية غير المشفرة كمنظمات مهمة للاستجابات المناعية؛ فعلى سبيل المثال، يلعب إنترفيرون-غاما (IFN-γ) دوراً مركزياً في دفاع المضيف ضد العدوى البكتيرية داخل الخلوية، بينما يمكن لـ miR-21 تثبيط إنتاج IFN-γ من خلال استهداف mRNA الخاص بـ IFN-γ مباشرة18. وبشكل جماعي، تؤكد هذه النتائج على الدور المركزي للآليات فوق الجينية في تنظيم الاستجابات المناعية.
تعتبر الخلايا المناعية محوراً أساسياً للوظيفة المناعية وتمثل محركات رئيسية لرفض الطعم، وهو محدد رئيسي لبقاء الطعم المزروع19,20,21. وبالرغم من أن الدراسات المناعية المستفيضة قد بحثت في الآليات الكامنة وراء رفض الطعم، إلا أن العديد من الجوانب لا تزال غير مفهومة بشكل كافٍ22. كما تظهر الأدلة المتزايدة أدواراً حاسمة للآليات فوق الجينية في تطور الخلايا المناعية وتمايزها ونضجها23,24. لذا، فإن دراسة الأساس الجزيئي لرفض الطعم من منظور فوق جيني قد يدعم التدخل المبكر والوقاية من رفض الطعم واعتلال الكلية المزمن في الطعوم الخيفية بعد زراعة الأعضاء، مع فوائد محتملة لبقاء الطعم على المدى الطويل. ومن بين التعديلات فوق الجينية المختلفة، يمثل مثيلة الحمض النووي (DNA methylation) الآلية الأكثر استقراراً في تنظيم عملية النسخ في جينوم الثدييات25. وبناءً على ذلك، تراجع هذه المراجعة دور مثيلة الحمض النووي في تطور الخلايا المناعية وتمايزها ووظيفتها، فضلاً عن مشاركتها في الرفض الحاد الذي يلي زراعة الأعضاء.
مراجعة ومنظور
1. تقنية تسلسل ومثيلة الحمض النووي DNA
تستخدم عملية مثيلة الحمض النووي DNA مادة S-adenosylmethionine كمانح لمجموعة الميثيل، وتقوم إنزيمات DNA methyltransferases بتحفيز الإضافة التساهمية لمجموعة ميثيل إلى الكربون الخامس في السيتوزين ضمن ثنائيات النوكليوتيد CpG (سيتوزين-فوسفات-جوانين)، مما يحول السيتوزين إلى 5-methylcytosine (5mC). وتضيف هذه التعديلات طبقة تنظيمية إضافية للتعبير الجيني تتجاوز تسلسل DNA نفسه. وبشكل عام، تسمح المناطق ذات مستويات المثيلة المنخفضة بارتباط البروتينات وتدعم بنية الكروماتين التي تعزز عملية نسخ الجينات النشطة26. وفي المقابل، يمكن لمناطق DNA المُمَثيلة أن تثبط نسخ الجينات والتعبير عنها من خلال استقطاب بروتينات MBD (بروتينات نطاق ربط ميثيل-CpG)، أو تعزيز تعديلات الهيستون ومعقدات إعادة تشكيل الكروماتين، أو منع ارتباط عوامل النسخ والبروتينات الأخرى الرابطة لـ DNA بشكل مباشر27,28,29. ومع ذلك، يمكن أن ترتبط مثيلة DNA أيضاً بتنشيط الجينات، خاصة داخل مناطق جسم الجين، حيث ترتبط إيجابياً بالتعبير الجيني. وعلى الرغم من أن هذه العلاقة تحدث بشكل أقل تكراراً، إلا أن مثيلة جسم الجين شائعة في الجينات التي يتم التعبير عنها بشكل واسع30,31.
يجب تفسير الوظيفة البيولوجية لمثيلة DNA ضمن سياقها الجينومي. غالبًا ما تتجمع ثنائيات النوكليوتيد CpG في مناطق تسمى جزر CpG، والتي تُعرف بأنها قطع من DNA يزيد طولها عن 200 زوج قاعدي (bp)، مع محتوى G+C لا يقل عن 50% ونسبة ملحوظة/متوقعة (Obs/Exp) لا تقل عن 0.632. وفي الجينوم الثديي، تعتبر ثنائيات النوكليوتيد CpG نادرة نسبيًا وتشكل حوالي 1% فقط من الجينوم. يرتبط ما يقرب من 60% من محفزات الجينات البشرية بجزر CpG، وعادة ما تكون هذه المناطق غير ممثيلة في الخلايا الطبيعية. وتصبح نسبة صغيرة فقط (~6%) ممثيلة خلال التطور المبكر أو تمايز الأنسجة33,34. وتشير شواطئ CpG إلى المناطق الواقعة ضمن 2,000 bp أعلى وأسفل جزر CpG، وترتبط حالة مثيلتها ارتباطًا وثيقًا بإسكات النسخ. ويحدث ما يقرب من 70% من المناطق الممثيلة تفاضليًا في شواطئ CpG أثناء إعادة برمجة المثيلة23,35. بالإضافة إلى ذلك، تحدث معظم المثيلة الخاصة بالأنسجة في الشواطئ بدلاً من جزر CpG34,35. وتقع رفوف CpG ضمن 2,000 bp أعلى وأسفل شواطئ CpG، بينما يشير مصطلح "البحر المفتوح" إلى جميع المناطق الجينومية المتبقية خارج جزر CpG وشواطئها ورفوفها.
تحدث عملية مثيلة الحمض النووي (DNA methylation) من خلال عمليتين رئيسيتين: المثيلة الصيانة (maintenance methylation) والمثيلة المبتدئة (de novo methylation). تحدث مثيلة الصيانة بشكل أساسي أثناء تضاعف الحمض النووي شبه المحافظ، حيث تقوم إنزيمات ميثيل ترانسفيراز الصيانة بنسخ أنماط المثيلة الموجودة إلى الشريط الوليد. ويعد إنزيم DNMT1 ميثيل ترانسفيراز الصيانة الرئيسي؛ حيث يستهدف بشكل تفضيلي الحمض النووي نصف الميثيلي (hemimethylated DNA)، وهو الميثيل ترانسفيراز الأكثر وفرة في الخلايا، ويتم نسخه بنشاط خلال طور S من الدورة الخلوية36. وفي المقابل، تعمل المثيلة المبتدئة على إنشاء أنماط مثيلة جديدة بشكل مستقل عن تضاعف الحمض النووي من خلال استهداف المواقع التي لم تكن ميثيلية سابقاً. ويعمل إنزيما DNMT3A وDNMT3B كميثيل ترانسفيراز مبتدئ أساسي، حيث يتم التعبير عنهما بدرجة عالية في الخلايا الجذعية الجنينية ويلعبان أدواراً أساسية في إنشاء أنماط المثيلة أثناء التطور الجنيني، ولكن ينخفض تعبيرهما مع تمايز الخلايا27. وتضم عائلة DNMT3 أيضاً البروتين DNMT3L، الذي يفتقر إلى النشاط التحفيزي ولكنه ضروري لإنشاء البصمة الجينومية الأمومية37. حيث يقوم DNMT3L بتعزيز نشاط DNMT3A وDNMT3B، مما يؤدي إلى تحسين كفاءة مثيلة الحمض النووي38. وعلى مستوى الجينوم، تخضع العديد من السيتوسينات الميثيلية لعملية إزالة الميثيلة (DNA demethylation)، لا سيما داخل مناطق جسم الجين. وتحدث إزالة الميثيلة من خلال آليات نشطة وسلبية؛ حيث تتضمن إزالة الميثيلة النشطة أكسدة 5mC إلى مشتقاتها المؤكسدة بواسطة إنزيمات TET39. أما إزالة الميثيلة السلبية، فتنتج عن التخفيف التدريجي للسيتوسينات الميثيلية أثناء تضاعف الحمض النووي في حالة غياب نشاط ميثيل ترانسفيراز الصيانة40.
نظرًا لأن مثيلة الحمض النووي (DNA methylation) تلعب دورًا مركزيًا في تنظيم نسخ الجينات والتعبير عنها، فقد أصبحت محورًا رئيسيًا للأبحاث على مدى العقد الماضي، مدفوعة جزئيًا بالتقدم في تقنيات الكشف عن المثيلة. وبناءً على الاختلافات في المعالجة المسبقة للعينات، يمكن تصنيف نهج الكشف عن مثيلة DNA بشكل عام إلى ثلاث فئات41. يعتمد النهج الأول على إنزيمات القطع الداخلية الحساسة للمثيلة (methylation-sensitive restriction endonucleases)، والتي تفشل بشكل انتقائي في قطع مناطق DNA الممثيلة، وبالتالي تولد شظايا ذات أحجام مختلفة بناءً على حالة المثيلة. ويقوم النهج الثاني بإثراء شظايا DNA الممثيلة باستخدام البروتينات الرابطة للمثيلة أو الأجسام المضادة التي تتعرف تحديدًا على 5-methylcytosine. أما النهج الثالث فيستخدم معالجة البيسلفيت (bisulfite treatment) لتحويل السيتوزينات غير الممثيلة إلى يوراسيلات مع ترك السيتوزينات الممثيلة دون تغيير، مما يسمح بالتمييز الدقيق بين المواقع الممثيلة وغير الممثيلة. وفي الوقت الحالي، يمثل تحويل البيسلفيت المقترن بتسلسل الجيل التالي (next-generation sequencing) الاستراتيجية الأكثر استخدامًا لتحليل مثيلة DNA. ويلخص الجدول 1 النهج الرئيسية للكشف عن المثيلة، بما في ذلك مبادئها، ومزاياها، وعيوبها، وتطبيقاتها المحتملة في أبحاث الزراعة. وتؤدي التطورات المستمرة في تقنيات الكشف عن مثيلة DNA إلى توسيع مجموعة الأدوات التقنية للأبحاث فوق الجينية (epigenetic research) ودعم تطوير استراتيجيات علاجية فوق جينية جديدة41,42,43,44,45.
2. خصائص الميثيلة في مراحل تطور وتمايز خلايا التيموس المبكرة
يتضمن رفض трансبلانت (الزرع) آليات معقدة تشمل استجابات مناعية both خلوية وبوسطة الأجسام المضادة. وتشير الأدلة الحالية في علم مناعة الزرع إلى أن المناعة التي تتوسطها الخلايا التائية تلعب دوراً مركزياً في رفض الطعم46,47. وتعمل الغدة الزعترية كعضو أساسي لتطور الخلايا التائية وتمايزها ونضجها48. وخلال تطور الخلايا الزعترية، وهي المرحلة السليفة للخلايا التائية، تخضع أنماط مثيلة الحمض النووي (DNA methylation) لإعادة تشكيل مستمرة وديناميكية. وتشمل هذه التغييرات كلاً من إزالة المثيلة والمثيلة في المناطق الجينومية التي تنظم نسخ الخلايا التائية، رغم أن هذه العمليات لا تحدث بطريقة متوازنة تماماً. فخلال التطور المبكر، تخضع الجينات التي تشفر المكونات الرئيسية لمستقبلات الخلايا التائية (TCR) والعوامل التنظيمية الأساسية، بما في ذلك CD3 وRUNX3 وRORC وRAG1 وLCK، بشكل غالب لعملية إزالة المثيلة7. وبشكل أوسع، تحدث إزالة مثيلة DNA بشكل متكرر أكثر من المثيلة أثناء تمايز الخلايا المناعية49,50. وفي المقابل، تكون المثيلة الجديدة (de novo methylation) محدودة نسبياً وتحدث بشكل رئيسي خلال مرحلة الالتزام المبكرة لتطور الخلايا الزعترية7. كما تُعد المثيلة الجديدة ضرورية لإسكات الجينات المرتبطة بالإمكانات متعددة القدرات للخلايا الجذعية، مما يسمح بالالتزام السلالي والتمايز7,51. وهناك ميزة أخرى مهمة لمثيلة DNA في الخلايا الزعترية وهي أن معظم تغييرات المثيلة تظل مستقرة وغير قابلة للعكس إلى حد كبير بمجرد استقرارها أثناء التمايز. ومع ذلك، تظهر بعض الجينات، مثل جينات RAG، تنظيماً ديناميكياً: حيث تخضع لإزالة المثيلة خلال التطور المبكر للخلايا المناعية ثم تتم إعادة مثيلتها في مراحل لاحقة7.
3. مثيلة الحمض النووي DNA في تمايز الخلايا المناعية ووظيفتها
يلعب مثيلة الحمض النووي (DNA methylation) دوراً حاسماً في تنظيم تمايز ووظيفة ومرونة مجموعات الخلايا المناعية المتنوعة، مما يؤثر بالتالي على نتائج الاستجابات المناعية لعمليات الزرع.
- خلايا المناعة التكيفية
- الخلايا التائية المساعدة (CD4+ الخلايا التائية)
CD4+ تعمل الخلايا التائية كخلايا فاعلة أساسية في الرفض الحاد لزراعة الأعضاء52,53تتمايز الخلايا التائية الساذجة (Tn) إلى عدة أنواع من خلايا CD4+ تتحدد المجموعات الفرعية للخلايا التائية من خلال آليات جينية وفوق جينية وآليات تنظيمية إضافية منسقة. وعند التحفيز بإشارات محددة، يمكن أن تتغير التضاريس فوق الجينية للخلايا التائية الساذجة، مما يؤدي إلى تغيير نسخ الجينات والتعبير عنها. ويمكن لهذه التغييرات أن تؤثر في نهاية المطاف على كل من نوع وكثافة الرفض المناعي الذي يلي عملية الزرع. وبعد تنشيط الخلايا التائية، فإن الـ إنترلوكين 2 (IL2) يخضع الجين لعملية إزالة ميثيل سريعة ويظل في حالة غير ميثيلية. ويعد هذا التغيير فوق الجيني ضرورياً لتعزيز نسخ وتعبير الجينات التي تدعم وظيفة الخلايا التائية.54.
تلعب مثيلة الحمض النووي (DNA methylation) أيضاً دوراً حاسماً في توجيه تمايز الخلايا التائية الساذجة (naive T cells) إلى مجموعات فرعية من الخلايا التائية المساعدة من النوع الأول (Th1) والنوع الثاني (Th2).55,56في خلايا CD4 الساذجة+ الخلايا التائية، الـ IFNG يخضع الجين لعملية ميثيلية عالية؛ حيث تزال مجموعات الميثيل منه تحديداً أثناء تمايز الخلايا Th1، بينما يظل عالي الميثيلية في خلايا Th257وفي المقابل، فإن الـ إنترلوكين 4 (IL4) يكون الجين ميثيلياً بشدة في الخلايا التائية الساذجة وخلايا Th1، ولكنه يخضع لإزالة الميثيل جزئياً في خلايا Th2.58ويمكن للعوامل الخارجية أن تنظم أنماط الميثيلة هذه بشكل أكبر من خلال تعديل نشاط إنزيمات ناقلة ميثيل الحمض النووي (DNMTs). فعلى سبيل المثال، يؤدي نقص فيتامين D إلى زيادة نشاط إنزيمات DNMT ويعزز فرط ميثيلة الـ IFNG الجين، بينما يمكن أن تؤدي مكملات فيتامين D إلى عكس هذه التغيرات59تؤثر الشيخوخة البيولوجية أيضاً على أنماط مثيلة الحمض النووي (DNA). وتُظهر الدراسات، بما في ذلك تلك التي أجراها Yu، أن التعبير عن الحمض النووي الريبوزي المرسال (mRNA) لإنزيم DNMT3a ومثيلة الـ إنترلوكين-4 (IL4) يزداد محفز الجين مع تقدم العمر، بينما يزداد مثيلة الـ IFNG انخفاض المحفز الجيني60تشير هذه النتائج إلى أن التغيرات المرتبطة بالعمر في مثيلة الحمض النووي (DNA methylation) قد تؤدي إلى إزاحة التوازن بين استجابات خلايا Th1 وخلايا Th2.
تتضمن تمايز الخلايا التائية الساذجة أيضاً مسارين آخرين مهمين للخلايا التائية CD4+ المجموعات الفرعية للخلايا التائية: الخلايا التائية المساعدة 17 (Th17) والخلايا التائية التنظيمية (Treg)61,62تُنظم عملية مثيلة الحمض النووي (DNA methylation) هذه العملية بدقة. ويُعد التعبير عن عامل النسخ ROR الخاص بالخلايا المساعدة T helper 17 (Th17)γوتعتمد السيتوكينات IL-17 على حالة الميثيلة في مناطق المحفز الجيني الخاصة بكل منها63,64,65يمكن لخلايا Th17 الموجودة ضمن أنسجة الطعم أن تؤدي إلى تفاقم رفض الطعم وتعزيز الإصابة الوعائية.66كما تؤثر مثيلة الحمض النووي (DNA methylation) على المرونة الوظيفية لخلايا Th17. ففي ظروف الالتهاب المزمن، يؤدي... IFNG يظل الجين في خلايا Th17 غير ميثيلي، مما يسمح لهذه الخلايا بإنتاج IFN-γونتيجة لذلك، يمكن لخلايا Th17 أن تكتسب سمات كل من النمط الظاهري Th1 والنمط الظاهري Th17.67علاوة على ذلك، في المختبر تظهر الدراسات أن ظروف تحفيز محددة يمكن أن تدفع خلايا Th17 للتمايز إلى خلايا Treg وظيفية ذات نشاط قوي في تثبيط المناعة.68.
وفي المقابل، تلعب الخلايا التائية التنظيمية (Treg cells) دوراً حاسماً في الحفاظ على التسامح المناعي وصيانة التوازن الداخلي ضمن الطعوم.69يمكن أن تنشأ هذه الخلايا في الغدة الزعترية أو تتمايز في الأطراف تحت تأثير عامل النمو التحويلي بيتا (TGF-β).βوبغض النظر عن مصدرها، تعبر الخلايا التائية التنظيمية (Treg) باستمرار عن عامل النسخ Foxp370تلعب التنظيمات فوق الجينية، ولا سيما مثيلة الحمض النووي (DNA methylation)، دوراً رئيسياً في التحكم في تعبير الجينات المرتبطة بوظيفة الخلايا التائية التنظيمية (Treg)، بما في ذلك Foxp3 و Ctla4وبذلك يؤثر بشكل مباشر على نشاطها النسخي71,72,73,74أثناء تطور الخلايا التائية التنظيمية (Treg) في الغدة الزعترية، فإن الـ Foxp3 يخضع الجين لعملية إزالة ميثيل تدريجية. وتستمر حالة إزالة الميثيل هذه بعد هجرة الخلايا إلى الأنسجة الطرفية، وتتطلب إشارات مستمرة من مستقبلات الخلايا التائية (TCR) بقوة مناسبة.62,75,76,77في حالة غياب DNMT1، يمكن لتحفيز مستقبل الخلايا التائية (TCR) أن يحفز بفعالية تعبير Foxp3 في الخلايا التائية السالبة لـ Foxp3 في كل من الغدة الزعترية والأنسجة الطرفية. ومع ذلك، إذا فشل تحفيز TCR في إحداث إعادة تشكيل فوق جيني كافٍ، فلن تتمكن الخلايا من الحفاظ على تعبير مستقر لـ Foxp3، وهو أمر ضروري للحفاظ على النمط الظاهري للخلايا التائية التنظيمية (Treg).62,75,78يخضع التعبير المستقر لـ Foxp3 بشكل كبير للتحكم بواسطة التعديلات فوق الجينية عند العناصر التنظيمية الموضعية، ولا سيما التسلسلات غير المشفرة المحفوظة (CNS).71,79,80ومن بين هذه المؤشرات، تعمل حالة مثيلة المنطقة منزوعة الميثيل الخاصة بالخلايا التائية المنظمة (TSDR) كعلامة موثوقة للتمييز بين مجموعات الخلايا التائية المنظمة المستقرة وغير المستقرة.71,81,82,83,84,85,86في خلايا T التنظيمية الساذجة الموجودة طبيعياً (nTregs)، تظل منطقة TSDR غير ميثيلية، مما يسمح باستقطاب عوامل النسخ مثل Stat5 وNFAT وRunx1 وCREB، والتي تدعم التعبير المستقر عن Foxp3. وفي المقابل، تكون منطقة TSDR في خلايا T التنظيمية المحفزة (iTregs) ميثيلية عادةً، مما يؤدي إلى تعبير أقل استقراراً عن Foxp3.72,74,87,88,89بالإضافة إلى ذلك، يؤدي فقدان إنزيمات إزالة الميثيل، مثل TET1 أو TET2، إلى فرط ميثيلة موقع Foxp3، مما يضعف وظيفة الخلايا التائية التنظيمية (Treg) ويعزز تطور أمراض المناعة الذاتية.90وتؤكد الدراسات السريرية كذلك أن المستويات الأعلى من إزالة ميثيل Foxp3 في عينات خزعة الطعم الكلوي الخيفي التي تعاني من رفض دون سريري ترتبط بتحسن نتائج الطعم.82,84.
تزايد البحث في الخلايا التائية المنظمة (Treg cells) كوسيلة لمنع رفض الطعوم الخيفية وتعزيز التسامح المناعي.91يجب أن يستمر وجود عدد كافٍ من الخلايا التائية المنظمة (Treg) داخل الطعم من أجل تثبيط الخلايا التائية المؤثرة التي تؤدي إلى رفض الطعم بشكل فعال، وبالتالي الحفاظ على التسامح المناعي.92ومع ذلك، تظهر الخلايا التائية المنظمة (Treg) درجة من عدم الاستقرار المظهري. ففي ظل ظروف معينة، يمكن أن تخضع لتغيرات فوق جينية، بما في ذلك إزالة الميثيل من الـ RORC جين، والذي يؤدي إلى التعبير عن السيتوكين المحرض للالتهاب IL-1793,94يسلط هذا التحول الضوء على مرونة الخلايا التائية التنظيمية (Treg cells)، ويفرض تحدياً أمام استخدامها العلاجي. كما تشير الدراسات التجريبية إلى أن التعديل فوق الجيني يمكن أن يعزز وظيفة الخلايا التائية التنظيمية. على سبيل المثال، قام Guo وآخرون. أظهرت النماذج الحيوانية أن الجمع بين مثبطات مثيلة الحمض النووي (DNA methylation inhibitors) وإنترلوكين-35 (IL-35) يزيد من تعبير Foxp3، ويعزز تمايز الخلايا التائية التنظيمية (Treg cell differentiation)، ويحسن بقاء الطعم.95على الرغم من هذه التطورات، لا يزال فهم الآليات المتعلقة بخلايا Treg غير مكتمل. وينبغي للدراسات المستقبلية تحديد الظروف التي تعزز تمايز خلايا Treg وتثبت نمطها الظاهري، بهدف تطبيق هذه النتائج في علاج الأمراض المناعية. - الخلايا التائية السامة للخلايا (CD8+ الخلايا التائية)
بعد التنشيط، فإن خلايا CD8 الساذجة+ تتمايز الخلايا التائية إلى خلايا مؤثرة سامة للخلايا تُعرف باسم الخلايا اللمفاوية التائية السامة للخلايا (CTLs). وتُصنف هذه الخلايا عادةً إلى مجموعتين فرعيتين: خلايا Tc1، التي تنتج IFN-γ، وخلايا Tc2 التي تنتج IL-4 و IL-596تظهر الدراسات السريرية أن نسبة CD69+/CD8+ ترتبط الخلايا التائية في الدم المحيطي لمرضى زراعة القلب بالرفض الشديد. بالإضافة إلى ذلك، فإن CD8+ تُظهر الخلايا التائية الموجودة داخل نسيج عضلة القلب بروتين CD69+ نمط ظاهري مُنشط ويُظهر نشاطاً ساماً للخلايا بوساطة البيرفورين97,98وتدعم الأدلة التجريبية بشكل أكبر دور CD8.+ الخلايا التائية في رفض трансپلانت. Jones وآخرون. أثبتت أن نقل خلايا CD8 المحددة للمستضد عبر مستقبلات الخلايا التائية (TCR) إلى فئران مستنزفة الخلايا التائية، والتي تم إنتاجها عن طريق استئصال الغدة التيموسية والعلاج بـ anti-CD4/CD8، قد أدى إلى+ الخلايا التائية وحدها كافية لتحفيز رفض طعوم القلب الخيفية غير المتطابقة تماماً99تُبرز هذه النتائج المساهمة الجوهرية لـ CD8+ تساهم الخلايا التائية في رفض الطعم بوساطة مناعية. كما ينظم مثيلة الحمض النووي (DNA methylation) بروتين CD8+ تطور الخلايا التائية ووظيفتها. في غياب DNMT1، يضعف بقاء الخلايا التيموسية.100بالإضافة إلى ذلك، فإن حذف DNMT3a في خلايا CD8 الناضجة+ تعزز الخلايا التائية تمايز الخلايا الذاكرية بينما تقلل من التمايز إلى خلايا فاعلة نهائية. ويتم التوسط في هذا التأثير جزئياً من خلال زيادة تعبير عامل الخلية التائية 1 (Tcf1)، حيث يستهدف DNMT3a المنطقة المحفزة لجين Tcf7 ويحفز عملية الميثيلة الجديدة في خلايا CD8 الفاعلة المبكرة.+ الخلايا التائية101علاوة على ذلك، وفي نموذج فأر مصاب بعدوى فيروسية حادة، يؤدي الحذف الشرطي لـ TET2 في الخلايا التائية إلى تعزيز تكوين خلايا CD8 الذاكرة.+ الخلايا التائية102وتُظهر هذه النتائج مجتمعةً أن مثيلة الحمض النووي (DNA methylation) تنظم بشكل حاسم تطور وتمايز والاستجابات الوظيفية لخلايا CD8.+ الخلايا التائية. - الخلايا البائية
تلعب الخلايا التائية دوراً محورياً في رفض الطعم؛ ومع ذلك، تساهم الخلايا البائية أيضاً في استجابات الرفض الخلوية والخلطية على حد سواء.103,104يتم الرفض الخلطي بشكل أساسي عبر الخلايا اللمفاوية البائية. وعند تنشيطها، تتمايز الخلايا البائية إلى خلايا بلازمية تنتج وتفرز كميات كبيرة من أجسام مضادة نوعية، والتي يمكن أن تحفز حدوث ضرر التهابي في الطُعم.105يعمل مثيلة الحمض النووي (DNA methylation) على تنظيم الاستجابات المناعية للخلايا البائية بشكل أكبر. لي وآخرون. أظهرت أن إزالة ميثيلة الحمض النووي (DNA demethylation) الواسعة تحدث خلال المراحل المبكرة من تطور الخلايا البائية (B cell)، وتحديداً ضمن مناطق جسم الجين ومناطق غير جزر CpG. وفي المقابل، يصبح التأثير التنظيمي لميثيلة الحمض النووي أقل وضوحاً في المراحل اللاحقة من نضج الخلايا البائية.106بالإضافة إلى ذلك، قام شاكنوفيتش (Shaknovich) وآخرون. تم تحديد فروق ذات دلالة إحصائية في أنماط مثيلة الحمض النووي (DNA methylation) بين خلايا B في المركز الجرثومي وخلايا B الساذجة.107تخضع الخلايا البائية في المركز الجرثومي لعملية نزع الميثيل، مما يغير التعبير عن الجينات الوظيفية ويؤثر على مسارات تأشير رئيسية، بما في ذلك NF-κمسارات B و MAPK107,108تُظهر الدراسات الوظيفية علاوة على ذلك أن مثيلة الحمض النووي (DNA methylation) تقيد نشاط الخلايا البائية. إذ يؤدي حذف إنزيمات ناقلة الميثيل الجديدة Dnmt3a وDnmt3b (نقص Dnmt3) إلى تعزيز تطور الخلايا البائية ونضجها. وفي الوقت ذاته، يعزز ذلك تنشيط الخلايا البائية ويدعم توسع الخلايا البائية في المراكز الجرثومية والخلايا البلازمية. وتشير هذه النتائج إلى أن مثيلة الحمض النووي الجديدة تعمل في الحالة الطبيعية على الحد من تنشيط الخلايا البائية وكبح تمايز الخلايا البلازمية.109.
- الخلايا التائية المساعدة (CD4+ الخلايا التائية)
- خلايا المناعة الفطرية
تتضمن الاستجابة المناعية التي تلي زراعة الأعضاء الصلبة تفاعلات منسقة بين المناعة الفطرية والمناعة التكيفية. ويشمل الجهاز المناعي الفطري خلايا مكونة للدم وأخرى غير مكونة للدم، مثل الخلايا الشجرية، والبلاعم، والخلايا القاتلة الطبيعية، والخلايا المتعادلة، والتي يمكن أن تساهم جميعها في حدوث الرفض المناعي بعد الزراعة.110.
تعمل الخلايا التغصنية كمنظمات رئيسية تربط بين المناعة الفطرية والمناعة التكيفية، مع القدرة على تعزيز إما التنشيط المناعي أو التحمل المناعي.111,112تخضع الخلايا المتغصنة، أثناء تمايزها من الخلايا الوحيدة، لتغيرات واسعة النطاق في مثيلة الحمض النووي (DNA methylation)، تتميز بانخفاض ملحوظ في مستويات المثيلة عبر العديد من المناطق الجينومية. وتحدث هذه التغيرات بشكل أساسي في مناطق المعززات (enhancer regions) ومواقع ارتباط عوامل النسخ الضرورية لتحديد السلالة الخلوية والتنشيط المناعي.113,114,115وتعد السمة المميزة لعملية التمايز هذه هي انخفاض تنظيم CD14 وزيادة تنظيم CD209 على سطح الخلية. ويرتبط هذا التحول بإزالة الميثيل من مواقع CpG ضمن المنطقة المحفزة لـ CD209 جين116بالإضافة إلى ذلك، فإن العلاج بمثبطات مثيلة الحمض النووي (DNA methylation inhibitors) يزيد بشكل ملحوظ من تعبير الجزيئات المحفزةร่วม مثل CD40 وCD86، مما يعزز تقديم المستضدات ويدعم النضج الوظيفي للخلايا التغصنية. وتشير هذه النتائج إلى أن مثيلة الحمض النووي تنظم بشكل مباشر وظيفة الخلايا التغصنية والنشاط المناعي.117.
تعد الخلايا الوحيدة والخلايا البلعمية مكونات أساسية في الجهاز المناعي لأنها تتوسط عملية البلعمة وتطهير الخلايا غير الطبيعية والممرضات الغازية. وتظهر أدلة واسعة أن الخلايا البلعمية لا تساهم فقط في الضرر الالتهابي الملاحظ في المراحل المبكرة من الرفض الحاد للطعم، بل تساهم أيضاً في تطور التليف أثناء الرفض المزمن المتأخر.118,119يتحكم التوازن بين البلاعم M1 (المنشطة كلاسيكياً) والبلاعم M2 (المنشطة بديلةً) بشكل حاسم في الاستجابات المناعية. حيث يؤدي التحول نحو سيادة البلاعم M1 إلى تعزيز الالتهاب وإصابة الأنسجة. وفي المقابل، فإن تقليل تعبير DNMT1، سواء عبر مثبطات مثيلة الحمض النووي أو تعطيل الجين، يقلل من المثيلة في مستقبلات البيروكسيسوم المنشطة بالتكاثر. γ1 (PPARγ1) المحفز. يعزز هذا التغيير تنشيط البلاعم من النوع M2 ويساعد في الحد من التلف الناجم عن الاستجابة المناعية.120وتسلط الاختلافات في أنماط مثيلة الحمض النووي (DNA) الضوء بشكل أكبر على دور التنظيم فوق الجيني في وظيفة الخلايا البلعمية. وقد حددت الدراسات تباينًا ملحوظًا في مثيلة المحفز لجينات محددة في الخلايا الوحيدة/البلعمية في الدم المحيطي بين الأفراد المصابين بمرض الشريان التاجي وغير المصابين به.121بالإضافة إلى ذلك، يتضمن تمايز الخلايا الوحيدة إلى خلايا بلعمية تغيرات جوهرية في الميثيلة عند مواقع ارتباط عوامل النسخ، مما يشير إلى أن ميثيلة الحمض النووي (DNA) في المناطق التنظيمية الرئيسية تؤدي دوراً دقيقاً وحاسماً في تمايز الخلايا البلعمية.122.
تمارس الخلايا القاتلة الطبيعية (NK) وظائف تنفيذية وتنظيمية في رفض الطعوم. إذ يمكنها تحفيز رفض الطعم وفي الوقت ذاته المساهمة في تطوير التسامح المناعي. وأثناء تمايز الخلايا الجذعية المكونة للدم في نخاع العظم إلى خلايا قاتلة طبيعية، يؤدي انخفاض مثيلة الـ مستقبلات الخلايا القاتلة الطبيعية المثبطة (KIR) يؤدي هذا الجين إلى زيادة تعبير KIR، والذي يلعب دوراً هاماً في التنظيم المناعي. بالإضافة إلى ذلك، فإن العلاج بمثبطات مثيلة الحمض النووي (DNA methylation inhibitors) يحفز إزالة المثيلة من الـ مستقبلات الخلايا القاتلة الطبيعية (KIR) الجين ويعزز تعبيره في الخلايا القاتلة الطبيعية (NK cells)123,124تشير هذه النتائج إلى أن مثيلة الحمض النووي (DNA methylation) تعد منظمًا رئيسيًا لوظيفة الخلايا القاتلة الطبيعية (NK cells).
تشارك الخلايا المتعادلة أيضاً بشكل نشط في رفض трансplant (زراعة الأعضاء). حيث تفرز الخلايا المتعادلة المنشطة مجموعة من الوسائط التي تعمل على استقطاب وتنشيط الخلايا المقدمة للمستضد، مما يؤدي إلى تحفيز استجابات الخلايا التائية النوعية للمستضد وتضخيم عملية الرفض المناعي.125,126,127يخضع بروتين PRV-1، وهو بروتين مرساة يُعبّر عنه في الخلايا المتعادلة، لتنظيم عن طريق مثيلة الحمض النووي (DNA) في منطقة المحفز الخاصة به، وذلك في كل من الظروف الفسيولوجية والمرضية.128.
4. مثيلة الحمض النووي (DNA) في مسارات الإشارات الرئيسية
لا ينظم مثيلة الحمض النووي (DNA methylation) نسخ الجينات الوظيفية بشكل مباشر فحسب، بل يؤثر أيضاً على السلوك الخلوي من خلال تعديل مسارات التأشير الرئيسية. على سبيل المثال، تؤدي فرط المثيلة في المنطقة المحفزة لجين البروتين المرتبط بـ frizzled المفرز (SFRP) إلى إسكات الجين. ويؤدي هذا الإسكات إلى تعطيل التنظيم الطبيعي لمسار تأشير Wnt/β-catenin، مما ينتج عنه تنشيط غير طبيعي لهذا المسار وتعزيز تطور سرطان القولون والمستقيم129. وبالمثل، فإن فرط المثيلة للمنظمات السلبية الموجودة في أعلى مسار تأشير mTOR في الخلايا المناعية يقلل من تعبيرها، مما يؤدي إلى تنشيط مفرط لـ mTOR والمساهمة في الإصابة الالتهابية في الكلى السكرية. ويمكن للتدخلات مثل decitabine أو تداخل الحمض النووي الريبي (RNA interference) أن تقلل من مثيلة هذه الجينات التنظيمية عن طريق تثبيط DNMT1، وبالتالي تخفيف تطور اعتلال الكلية السكري130. بالإضافة إلى ذلك، يمكن لمثبطات ناقلة ميثيل الحمض النووي (DNA methyltransferase inhibitors) تثبيط تكاثر الخلايا عن طريق تنظيم مسارات تأشير مثل NF-κB و JAK/STAT، مما يؤثر بالتالي على نشوء المرض وتطوره131,132 (الشكل 1).
5. الآثار السريرية: التفاعلات بين الأدوية المثبطة للمناعة ومثيلة الحمض النووي (DNA methylation)
أظهرت العوامل المثبطة للمناعة ضمن معايير الرعاية القياسية أنها تؤثر على أنماط مثيلة الحمض النووي (DNA methylation) في الخلايا المناعية، على الرغم من تباين هذه التأثيرات باختلاف الأدوية والسياقات الجينومية. وقد أثبتت الدراسات حول مثيلة محفز IFNγ في الخلايا التائية أن حمض الميكوفينوليك (mycophenolic acid) يضاد عملية إزالة المثيلة التي يحفزها تنشيط الخلايا التائية، بينما لا يمارس التاكروليموس (tacrolimus) التأثير ذاته في هذا الموضع المحدد133. وفي المقابل، تبين أن السيروليموس (sirolimus) يعمل على تعديل ملفات المثيلة الشاملة من خلال تأثيراته على مسارات إشارات mTOR134، كما ثبت أن مثيلة الحمض النووي نفسها تنظم مسار mTOR، مما يؤثر بالتالي على بقاء الطعم الخيفي والرفض الحاد بعد زراعة الكلى135. علاوة على ذلك، تؤدي الجلوكوكورتيكويدات مثل الديكساميثازون (dexamethasone) إلى إعادة تشكيل واسعة النطاق لمثيلة الحمض النووي داخل القسم المناعي المحيطي. ويعمل مؤشر مثيلة الديكساميثازون في الخلايا المتعادلة كعلامة ديناميكية دوائية حساسة للتعرض للجلوكوكورتيكويد ويرتبط بالملفات المناعية المثبطة للمناعة136. كما أفادت التقارير بأن العلاج التحريضي بـ ATG يؤدي إلى تغيير ميثيلوم الحمض النووي لدى متلقي زراعة الكلى، وأظهرت النماذج القائمة على المثيلة قدرة على التنبؤ بخطر العدوى بشكل أكثر فعالية من الملفات النسخية (transcriptomic profiles)137. وقد يؤثر التباين فوق الجيني الفردي على استجابات المرضى لهذه العلاجات، مما يشير إلى أن المؤشرات الحيوية للمثيلة يمكن أن توجه الأنظمة المثبطة للمناعة المخصصة لكل مريض136,137. وتستحق هذه التفاعلات بين الدواء والإبيجينوم مزيداً من الاستقصاء لأنها قد تحمل تداعيات هامة لتحسين نتائج الطعوم على المدى الطويل.
6. التحديات والآفاق: الموازنة بين التعديل فوق الجيني والسلامة المناعية
على الرغم من فعاليتها الواعدة في عمليات الزرع، فإن مثبطات إنزيم DNA methyltransferase (DNMTis)، مثل azacitidine وdecitabine، تنطوي على مخاطر عدوى ومخاطر مسرطنة. وقد ارتبط العلاج بهذه العوامل بمضاعفات إنتانية شديدة138,139، كما ارتبط التعرض الجهازي للعوامل المزيلة للميثيل بزيادة خطر التحول إلى ابيضاض الدم النخاعي الحاد الثانوي، حيث أظهر المرضى المصابون متوسط بقاء إجمالي يقل عن 5 أشهر140. وعلاوة على السمية المرتبطة بالأدوية، يمثل عدم وجود خصوصية لنوع الخلايا تحدياً هاماً؛ إذ قد يؤدي إزالة الميثيل الجهازي إلى زعزعة استقرار قسم الخلايا التائية التنظيمية (Treg) مع تنشيط الخلايا التائية المؤثرة، مما قد يؤدي إلى تفاقم حالة الرفض141، وقد يضعف حماية الخلايا التائية الذاكرة CD8+ ضد المسببات المرضية الانتهازية مثل CMV101,102.
للتغلب على هذه القيود، تهدف الاستراتيجيات الناشئة إلى تحقيق تعديل محدد لنوع الخلية والموقع الجيني. ويمكن لمنصات الجسيمات النانوية أن توصل DNMT بشكل تفضيلي إلى الخلايا المتسللة إلى الطعم142,143. كما يتيح تحرير الإبيجينوم باستخدام CRISPR/dCas9 إزالة الميثيل المستهدفة من Foxp3-TSDR لتثبيت خلايا Tregs دون حدوث تأثيرات شاملة144,145. وقد تدعم المراقبة الموجهة بالمؤشرات الحيوية أيضاً ترجمة سريرية أكثر أماناً146.
الاستنتاجات
يظل تحسين بقاء الطعم هدفاً أساسياً في أبحاث زراعة الأعضاء. ويُعد رفض الطعم عملية مناعية معقدة تتفاعل فيها التعديلات فوق الجينية من كل من العضو المتبرع والمستقبل ديناميكياً لتشكيل المشهد فوق الجيني العام. ويمثل الجهاز المناعي للمستقبل محركاً رئيسياً لرفض الطعم؛ حيث تنظم الآليات فوق الجينية بشكل حاسم تطور الخلايا المناعية وتمايزها ووظيفتها، مما يؤثر بالتالي على استجابات الرفض وبقاء الطعم بعد عملية الزراعة. بالإضافة إلى ذلك، تزيد عوامل مثل الأدوية المثبطة للمناعة، والعدوى، والبيئة ما بعد الزراعة من تعقيد العلاقة بين التنظيم فوق الجيني والاستجابات المناعية. ويمكن لهذه العوامل أن تغير الأنماط فوق الجينية وتعدل سلوك الخلايا المناعية، مما يضيف طبقة أخرى من التعقيد إلى نتائج الزراعة. ولذلك، هناك حاجة إلى مزيد من الاستقصاء حول العلاقة بين الآليات فوق الجينية ورفض الطعم لتحديد علامات حيوية وأهداف علاجية جديدة، وتحسين النهج التشخيصية واستراتيجيات العلاج في زراعة الأعضاء.
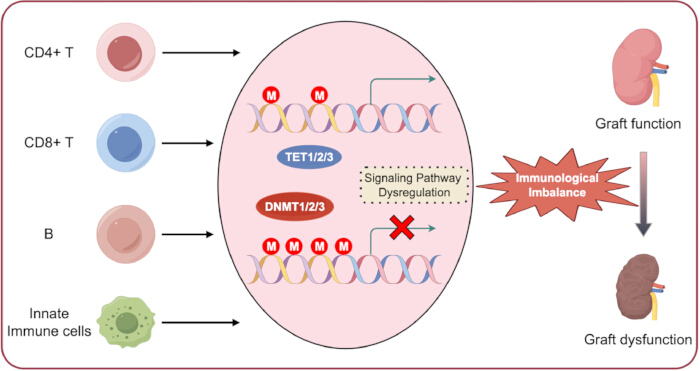
الشكل 1. مثيلة DNA في مناعة الزرع. تحافظ الخلايا المناعية على أنماط مميزة من مثيلة DNA الجوهرية طوال دورة حياتها. يمكن أن يؤدي اختلال هذه العملية الفسيولوجية إلى حدوث مثيلة غير طبيعية في DNA وخلل في تنظيم مسارات الإشارات اللاحقة، مما يؤدي في النهاية إلى ضعف التوازن المناعي وفشل الطعم الخيفي.يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| الطريقة | المبدأ | المميزات | القيود | التطبيقات في زراعة الأعضاء |
| MeDIP-seq⁴¹ | إثراء باستخدام أجسام مضادة لـ 5mC + NGS | فعالة من حيث التكلفة للتحليل على مستوى الجينوم بالكامل؛ مناسبة لمجموعات العينات الكبيرة | دقة منخفضة (~100–300 bp)؛ لا يمكن التمييز بين 5mC و 5hmC | فحص تغيرات الميثيلة الشاملة في PBMCs من متلقي عمليات الزراعة |
| WGBS⁴² | تحويل البيسلفيت + NGS | دقة على مستوى القاعدة الواحدة؛ تغطية على مستوى الجينوم بالكامل | تكلفة عالية؛ تتطلب حجماً كبيراً من البيانات | رسم خرائط شامل للميثيلوم في خزعات الطعوم؛ تحديد مناطق DMRs جديدة مرتبطة بالرفض |
| RRBS⁴³ | إثراء باستخدام إنزيمات التقييد + تحويل البيسلفيت + NGS | فعالة من حيث التكلفة؛ تغطية عالية للمناطق الغنية بـ CpG | تغطية محدودة للمناطق غير الغنية بـ CpG أو الفقيرة بـ CpG | تحليل مستهدف للميثيلوم في أنسجة الطعوم مع تقليل تكلفة التسلسل |
| Methylation-specific PCR⁴⁴ | تحويل البيسلفيت + PCR باستخدام بادئات متخصصة للميثيلة | حساسية عالية؛ بسيطة وسريعة ومنخفضة التكلفة | تستهدف مواقع محددة فقط؛ تحليل نوعي أو تحليل كمي محدود | التحقق من صحة DMRs المرشحة من مجموعات الاكتشاف؛ تطوير المؤشرات الحيوية السريرية |
| Pyrosequencing⁴⁵ | تحويل البيسلفيت + التسلسل عن طريق الاصطناع | كمي؛ دقة على مستوى القاعدة الواحدة في المواقع المستهدفة | إنتاجية متوسطة؛ تتطلب تحديداً مسبقاً للأهداف | القياس الكمي الدقيق لمستويات الميثيلة في مواقع CpG محددة، مثل FOXP3 TSDR في خلايا Treg |
الجدول 1: ملخص لأبرز منهجيات الكشف عن مثيلة الحمض النووي DNA. يلخص الجدول طرق الكشف عن مثيلة الحمض النووي DNA الشائعة، ومبادئها، ومزاياها، وعيوبها، وتطبيقاتها المحتملة في أبحاث زراعة الأعضاء.
الإفصاحات
يصرح المؤلفون بعدم وجود أي مصالح متضاربة أو تضارب محتمل في المصالح.
شكر وتقدير
يتوجه المؤلفون بالشكر إلى Figdraw للمساعدة في إعداد الأشكال التوضيحية.
المراجع
- Güell-Alonso R, Cabrera-Pérez R, Vives J. Immunocompatibility in transplantation: adapting to a changing therapeutic landscape. Front Immunol. 2025;16:1648534.
- Li XQ, Ding RD, Cai JZ. Organ transplantation: current status, challenges, and future prospects. MedComm. 2026;7(1):e70567.
- Medzhitov R, Horng T. Transcriptional control of the inflammatory response. Nat Rev Immunol. 2009;9:692–703.
- Bagci H, Fisher AG. DNA demethylation in pluripotency and reprogramming: the role of tet proteins and cell division. Cell Stem Cell. 2013;13:265–269.
- Gu TP, et al. The role of Tet3 DNA dioxygenase in epigenetic reprogramming by oocytes. Nature. 2011;477:606–610.
- Cedar H, Bergman Y. Programming of DNA methylation patterns. Annu Rev Biochem. 2012;81:97–117.
- Rodriguez RM, et al. Regulation of the transcriptional program by DNA methylation during human αβ T-cell development. Nucleic Acids Res. 2015;43:760–774.
- Rauch TA, et al. A human B cell methylome at 100-base pair resolution. Proc Natl Acad Sci U S A. 2009;106:671–678.
- Hardbower DM, et al. Ornithine decarboxylase regulates M1 macrophage activation and mucosal inflammation via histone modifications. Proc Natl Acad Sci U S A. 2017;114:E751–E760.
- De Santa F, et al. The histone H3 lysine-27 demethylase Jmjd3 links inflammation to inhibition of polycomb-mediated gene silencing. Cell. 2007;130:1083–1094.
- Antignano F, Zaph C. Regulation of CD4 T-cell differentiation and inflammation by repressive histone methylation. Immunol Cell Biol. 2015;93:245–252.
- Wei G, et al. Global mapping of H3K4me3 and H3K27me3 reveals specificity and plasticity in lineage fate determination of differentiating CD4+ T cells. Immunity. 2009;30:155–167.
- Liu Z, et al. The histone H3 lysine-27 demethylase Jmjd3 plays a critical role in specific regulation of Th17 cell differentiation. J Mol Cell Biol. 2015;7:505–516.
- He H, et al. Histone methylation mediates plasticity of human FOXP3(+) regulatory T cells by modulating signature gene expressions. Immunology. 2014;141:362–376.
- Menden H, et al. Histone deacetylase 6 regulates endothelial MyD88-dependent canonical TLR signaling, lung inflammation, and alveolar remodeling in the developing lung. Am J Physiol Lung Cell Mol Physiol. 2019;317:L332–L346.
- Irizarry-Caro RA, et al. TLR signaling adapter BCAP regulates inflammatory to reparatory macrophage transition by promoting histone lactylation. Proc Natl Acad Sci U S A. 2020;117:30628–30638.
- Williams CJ, et al. The chromatin remodeler Mi-2beta is required for CD4 expression and T cell development. Immunity. 2004;20:719–733.
- Yang F, et al. MiR-21 is remotely governed by the commensal bacteria and impairs anti-TB immunity by down-regulating IFN-γ. Front Microbiol. 2020;11:512581.
- Nankivell BJ, Kuypers DR. Diagnosis and prevention of chronic kidney allograft loss. Lancet. 2011;378:1428–1437.
- Zununi Vahed S, et al. Genetics and epigenetics of chronic allograft dysfunction in kidney transplants. Iran J Kidney Dis. 2016;10:1–9.
- Goldberg RJ, Weng FL, Kandula P. Acute and chronic allograft dysfunction in kidney transplant recipients. Med Clin North Am. 2016;100:487–503.
- Wood KJ, Bushell A, Hester J. Regulatory immune cells in transplantation. Nat Rev Immunol. 2012;12:417–430.
- Ji H, et al. Comprehensive methylome map of lineage commitment from haematopoietic progenitors. Nature. 2010;467:338–342.
- Suarez-Alvarez B, Rodriguez RM, Fraga MF, Lopez-Larrea C. DNA methylation: a promising landscape for immune system-related diseases. Trends Genet. 2012;28:506–514.
- Eckhardt F, et al. DNA methylation profiling of human chromosomes 6, 20 and 22. Nat Genet. 2006;38:1378–1385.
- Thomson JP, et al. CpG islands influence chromatin structure via the CpG-binding protein Cfp1. Nature. 2010;464:1082–1086.
- Esteller M. Epigenetic gene silencing in cancer: the DNA hypermethylome. Hum Mol Genet. 2007;16(Spec No 1):R50–R59.
- Lopez-Serra L, Esteller M. Proteins that bind methylated DNA and human cancer: reading the wrong words. Br J Cancer. 2008;98:1881–1885.
- Kuroda A, et al. Insulin gene expression is regulated by DNA methylation. PLoS One. 2009;4:e6953.
- Hellman A, Chess A. Gene body-specific methylation on the active X chromosome. Science. 2007;315:1141–1143.
- Jones PA. Functions of DNA methylation: islands, start sites, gene bodies and beyond. Nat Rev Genet. 2012;13:484–492.
- Esteller M. Epigenetics in evolution and disease. Lancet. 2008;372:S90–S96.
- Straussman R, et al. Developmental programming of CpG island methylation profiles in the human genome. Nat Struct Mol Biol. 2009;16:564–571.
- Irizarry RA, et al. The human colon cancer methylome shows similar hypo- and hypermethylation at conserved tissue-specific CpG island shores. Nat Genet. 2009;41:178–186.
- Doi A, et al. Differential methylation of tissue- and cancer-specific CpG island shores distinguishes human induced pluripotent stem cells, embryonic stem cells and fibroblasts. Nat Genet. 2009;41:1350–1353.
- Portela A, Esteller M. Epigenetic modifications and human disease. Nat Biotechnol. 2010;28:1057–1068.
- Bourc'his D, et al. Dnmt3L and the establishment of maternal genomic imprints. Science. 2001;294:2536–2539.
- Gowher H, et al. Mechanism of stimulation of catalytic activity of Dnmt3A and Dnmt3B DNA-(cytosine-C5)-methyltransferases by Dnmt3L. J Biol Chem. 2005;280:13341–13348.
- Wu X, Zhang Y. TET-mediated active DNA demethylation: mechanism, function and beyond. Nat Rev Genet. 2017;18:517–534.
- Bochtler M, Kolano A, Xu GL. DNA demethylation pathways: additional players and regulators. Bioessays. 2017;39:1–13.
- Laird PW. Principles and challenges of genomewide DNA methylation analysis. Nat Rev Genet. 2010;11:191–203.
- Lister R, et al. Human DNA methylomes at base resolution show widespread epigenomic differences. Nature. 2009;462:315–322.
- Meissner A, et al. Reduced representation bisulfite sequencing for comparative high-resolution DNA methylation analysis. Nucleic Acids Res. 2005;33:5868–5877.
- Herman JG, et al. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc Natl Acad Sci U S A. 1996;93:9821–9826.
- Colella S, et al. Sensitive and quantitative universal pyrosequencing methylation analysis of CpG sites. Biotechniques. 2003;35:114–120.
- Nankivell BJ, Alexander SI. Rejection of the kidney allograft. N Engl J Med. 2010;363:1451–1462.
- Gelman AE, et al. CD4+ T lymphocytes are not necessary for the acute rejection of vascularized mouse lung transplants. J Immunol. 2008;180:4754–4762.
- Seo W, Taniuchi I. Transcriptional regulation of early T-cell development in the thymus. Eur J Immunol. 2016;46:531–538.
- Calvanese V, et al. A promoter DNA demethylation landscape of human hematopoietic differentiation. Nucleic Acids Res. 2012;40:116–131.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Challen GA, et al. Dnmt3a is essential for hematopoietic stem cell differentiation. Nat Genet. 2011;44:23–31.
- Chitilian HV, et al. The strength of cell-mediated xenograft rejection in the mouse is due to the CD4+ indirect response. Xenotransplantation. 1998;5:93–98.
- Pierson RN, et al. Xenogeneic skin graft rejection is especially dependent on CD4+ T cells. J Exp Med. 1989;170:991–996.
- Bruniquel D, Schwartz RH. Selective, stable demethylation of the interleukin-2 gene enhances transcription by an active process. Nat Immunol. 2003;4:235–240.
- Sanders VM. Epigenetic regulation of Th1 and Th2 cell development. Brain Behav Immun. 2006;20:317–324.
- Wilson CB, Rowell E, Sekimata M. Epigenetic control of T-helper-cell differentiation. Nat Rev Immunol. 2009;9:91–105.
- Schoenborn JR, et al. Comprehensive epigenetic profiling identifies multiple distal regulatory elements directing transcription of the gene encoding interferon-gamma. Nat Immunol. 2007;8:732–742.
- Santangelo S, et al. Chromatin structure and DNA methylation of the IL-4 gene in human T(H)2 cells. Chromosome Res. 2009;17:485–496.
- Jiao X, et al. Vitamin D deficiency during pregnancy affects the function of Th1/Th2 cells and methylation of IFN-γ gene in offspring rats. Immunol Lett. 2019;212:98–105.
- Xia Y, et al. Age-related changes in DNA methylation associated with shifting Th1/Th2 balance. Inflammation. 2016;39:1892–1903.
- Muranski P, Restifo NP. Essentials of Th17 cell commitment and plasticity. Blood. 2013;121:2402–2414.
- Ohkura N, et al. T cell receptor stimulation-induced epigenetic changes and Foxp3 expression are independent and complementary events required for Treg cell development. Immunity. 2012;37:785–799.
- Janson PCJ, et al. Profiling of CD4+ T cells with epigenetic immune lineage analysis. J Immunol. 2011;186:92–102.
- Thomas RM, Sai H, Wells AD. Conserved intergenic elements and DNA methylation cooperate to regulate transcription at the il17 locus. J Biol Chem. 2012;287:25049–25059.
- Huang Y, et al. Decipherer manifestations and Treg/Th17 imbalance in multi-staging rheumatoid arthritis and correlation with TSDR/RORC methylation. Mol Immunol. 2020;127:1–11.
- Yuan X, et al. A novel role of CD4 Th17 cells in mediating cardiac allograft rejection and vasculopathy. J Exp Med. 2008;205:3133–3144.
- Cohen CJ, et al. Human Th1 and Th17 cells exhibit epigenetic stability at signature cytokine and transcription factor loci. J Immunol. 2011;187:5615–5626.
- Ye J, et al. Human tumor-infiltrating Th17 cells have the capacity to differentiate into IFN-γ+ and FOXP3+ T cells with potent suppressive function. Eur J Immunol. 2011;41:936–951.
- Issa F, Chandrasekharan D, Wood KJ. Regulatory T cells as modulators of chronic allograft dysfunction. Curr Opin Immunol. 2011;23:648–654.
- Josefowicz SZ, Rudensky A. Control of regulatory T cell lineage commitment and maintenance. Immunity. 2009;30:616–625.
- Baron U, et al. DNA demethylation in the human FOXP3 locus discriminates regulatory T cells from activated FOXP3(+) conventional T cells. Eur J Immunol. 2007;37:2378–2389.
- Kim HP, Leonard WJ. CREB/ATF-dependent T cell receptor-induced FoxP3 gene expression: a role for DNA methylation. J Exp Med. 2007;204:1543–1551.
- Morikawa H, et al. Differential roles of epigenetic changes and Foxp3 expression in regulatory T cell-specific transcriptional regulation. Proc Natl Acad Sci U S A. 2014;111:5289–5294.
- Polansky JK, et al. Methylation matters: binding of Ets-1 to the demethylated Foxp3 gene contributes to the stabilizationization of Foxp3 expression in regulatory T cells. J Mol Med (Berl). 2010;88:1029–1040.
- Toker A, et al. Active demethylation of the Foxp3 locus leads to the generation of stable regulatory T cells within the thymus. J Immunol. 2013;190:3180–3188.
- Jordan MS, et al. Thymic selection of CD4+CD25+ regulatory T cells induced by an agonist self-peptide. Nat Immunol. 2001;2:301–306.
- Kawahata K, et al. Generation of CD4(+)CD25(+) regulatory T cells from autoreactive T cells simultaneously with their negative selection in the thymus and from nonautoreactive T cells by endogenous TCR expression. J Immunol. 2002;168:4399–4405.
- Josefowicz SZ, Wilson CB, Rudensky AY. Cutting edge: TCR stimulation is sufficient for induction of Foxp3 expression in the absence of DNA methyltransferase 1. J Immunol. 2009;182:6648–6652.
- Floess S, et al. Epigenetic control of the foxp3 locus in regulatory T cells. PLoS Biol. 2007;5:e38.
- Polansky JK, et al. DNA methylation controls Foxp3 gene expression. Eur J Immunol. 2008;38:1654–1663.
- Barzaghi F, et al. Demethylation analysis of the FOXP3 locus shows quantitative defects of regulatory T cells in IPEX-like syndrome. J Autoimmun. 2012;38:49–58.
- Bestard O, et al. Intragraft regulatory T cells in protocol biopsies retain foxp3 demethylation and are protective biomarkers for kidney graft outcome. Am J Transplant. 2011;11:2162–2172.
- Liu J, et al. T regulatory cells in cord blood—FOXP3 demethylation as reliable quantitative marker. PLoS One. 2010;5:e13267.
- Wieczorek G, et al. Quantitative DNA methylation analysis of FOXP3 as a new method for counting regulatory T cells in peripheral blood and solid tissue. Cancer Res. 2009;69:599–608.
- Zhuo C, et al. Higher FOXP3-TSDR demethylation rates in adjacent normal tissues in patients with colon cancer were associated with worse survival. Mol Cancer. 2014;13:153.
- Lal G, et al. Epigenetic regulation of Foxp3 expression in regulatory T cells by DNA methylation. J Immunol. 2009;182:259–273.
- Zhou L, Chong MM, Littman DR. Plasticity of CD4+ T cell lineage differentiation. Immunity. 2009;30:646–655.
- Burchill MA, et al. IL-2 receptor beta-dependent STAT5 activation is required for the development of Foxp3+ regulatory T cells. J Immunol. 2007;178:280–290.
- Kanamori M, et al. Induced regulatory T cells: their development, stability, and applications. Trends Immunol. 2016;37:803–811.
- Yang R, et al. Hydrogen sulfide promotes Tet1- and Tet2-mediated Foxp3 demethylation to drive regulatory T cell differentiation and maintain immune homeostasis. Immunity. 2015;43:251–263.
- Issa F, Robb RJ, Wood KJ. The where and when of T cell regulation in transplantation. Trends Immunol. 2013;34:107–113.
- Issa F, Wood KJ. CD4+ regulatory T cells in solid organ transplantation. Curr Opin Organ Transplant. 2010;15:757–764.
- Suarez-Alvarez B, Baragano Raneros A, Ortega F, Lopez-Larrea C. Epigenetic modulation of the immune function: a potential target for tolerance. Epigenetics. 2013;8:694–702.
- Schmidl C, et al. Epigenetic reprogramming of the RORC locus during in vitro expansion is a distinctive feature of human memory but not naive Treg. Eur J Immunol. 2011;41:1491–1498.
- Guo H, et al. Inhibiting cardiac allograft rejection with interleukin-35 therapy combined with decitabine treatment in mice. Transpl Immunol. 2013;29:99–104.
- Betts RJ, Kemeny DM. CD8+ T cells in asthma: friend or foe? Pharmacol Ther. 2009;121:123–131.
- Schwengerdt KO, Fricker FJ, Bahjat KS, Kuntz ST. Increased expression of the lymphocyte early activation marker CD69 in peripheral blood correlates with histologic evidence of cardiac allograft rejection. Transplantation. 2000;69:2102–2107.
- Rutella S, et al. Induction of CD69 antigen on normal CD4+ and CD8+ lymphocyte subsets and its relationship with the phenotype of responding T-cells. Cytometry. 1999;38:95–101.
- Jones ND, et al. T-cell activation, proliferation, and memory after cardiac transplantation in vivo. Ann Surg. 1999;229:570–578.
- Lee PP, et al. A critical role for Dnmt1 and DNA methylation in T cell development, function, and survival. Immunity. 2001;15:763–774.
- Ladle BH, et al. De novo DNA methylation by DNA methyltransferase 3a controls early effector CD8+ T-cell fate decisions following activation. Proc Natl Acad Sci U S A. 2016;113:10631–10636.
- Carty SA, et al. The loss of TET2 promotes CD8(+) T cell memory differentiation. J Immunol. 2018;200:82–91.
- Schiffer L, et al. Chemokine CXCL13 as a new systemic biomarker for B-cell involvement in acute T cell-mediated kidney allograft rejection. Int J Mol Sci. 2019;20(10):2552. doi:10.3390/ijms20102552.
- Xu H, He X, Xu R. B cell activating factor, renal allograft antibody-mediated rejection, and long-term outcome. J Immunol Res. 2018;2018:5251801.
- Schmitz R, et al. B cells in transplant tolerance and rejection: friends or foes? Transpl Int. 2020;33:30–40.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Shaknovich R, et al. DNA methyltransferase 1 and DNA methylation patterning contribute to germinal center B-cell differentiation. Blood. 2011;118:3559–3569.
- Caron G, et al. Cell-cycle-dependent reconfiguration of the DNA methylome during terminal differentiation of human B cells into plasma cells. Cell Rep. 2015;13:1059–1071.
- Barwick BG, et al. B cell activation and plasma cell differentiation are inhibited by de novo DNA methylation. Nat Commun. 2018;9:1900.
- Kaur BP, Secord E. Innate immunity. Pediatr Clin North Am. 2019;66:905–911.
- Steinman RM, Banchereau J. Taking dendritic cells into medicine. Nature. 2007;449:419–426.
- Merad M, Collin M, Bromberg J. Dendritic cell homeostasis and trafficking in transplantation. Trends Immunol. 2007;28:353–359.
- Zhang X, et al. DNA methylation dynamics during ex vivo differentiation and maturation of human dendritic cells. Epigenetics Chromatin. 2014;7:21.
- Pacis A, et al. Bacterial infection remodels the DNA methylation landscape of human dendritic cells. Genome Res. 2015;25:1801–1811.
- Klug M, et al. Active DNA demethylation in human postmitotic cells correlates with activating histone modifications, but not transcription levels. Genome Biol. 2010;11:R63.
- Bullwinkel J, Lüdemann A, Deberry J, Singh PB. Epigenotype switching at the CD14 and CD209 genes during differentiation of human monocytes to dendritic cells. Epigenetics. 2011;6:45–51.
- Frikeche J, et al. Impact of the hypomethylating agent 5-azacytidine on dendritic cells function. Exp Hematol. 2011;39:1056–1063.
- van den Bosch TP, et al. CD16+ monocytes and skewed macrophage polarization toward M2 type hallmark heart transplant acute cellular rejection. Front Immunol. 2017;8:346.
- Wang YY, et al. Macrophage-to-myofibroblast transition contributes to interstitial fibrosis in chronic renal allograft injury. J Am Soc Nephrol. 2017;28:2053–2067.
- Wang X, et al. Epigenetic regulation of macrophage polarization and inflammation by DNA methylation in obesity. JCI Insight. 2016;1:e87748.
- Bakshi C, Vijayvergiya R, Dhawan V. Aberrant DNA methylation of M1-macrophage genes in coronary artery disease. Sci Rep. 2019;9:1429.
- Dekkers KF, et al. Human monocyte-to-macrophage differentiation involves highly localized gain and loss of DNA methylation at transcription factor binding sites. Epigenetics Chromatin. 2019;12:34.
- Li G, Yu M, Weyand CM, Goronzy JJ. Epigenetic regulation of killer immunoglobulin-like receptor expression in T cells. Blood. 2009;114:3422–3430.
- Schenk A, Bloch W, Zimmer P. Natural killer cells—an epigenetic perspective of development and regulation. Int J Mol Sci. 2016;17:326.
- Scapini P, et al. The neutrophil as a cellular source of chemokines. Immunol Rev. 2000;177:195–203.
- Chertov O, Yang D, Howard OM, Oppenheim JJ. Leukocyte granule proteins mobilize innate host defenses and adaptive immune responses. Immunol Rev. 2000;177:68–78.
- Hirayama S, et al. Prevention of neutrophil migration ameliorates rat lung allograft rejection. Mol Med. 2006;12:208–213.
- Jelinek J, et al. Epigenetic control of PRV-1 expression on neutrophils. Exp Hematol. 2007;35:1677–1683.
- Suzuki H, et al. Epigenetic inactivation of SFRP genes allows constitutive WNT signaling in colorectal cancer. Nat Genet. 2004;36:417–422.
- Chen G, et al. Aberrant DNA methylation of mTOR pathway genes promotes inflammatory activation of immune cells in diabetic kidney disease. Kidney Int. 2019;96:409–420.
- Shang D, Han T, Xu X, Liu Y. Decitabine induces G2/M cell cycle arrest by suppressing p38/NF-κB signaling in human renal clear cell carcinoma. Int J Clin Exp Pathol. 2015;8:11140–11148.
- Zhu Z, et al. STAT3 signaling pathway is involved in decitabine induced biological phenotype regulation of acute myeloid leukemia cells. Am J Transl Res. 2015;7:1896–1907.
- Peters F, et al. Interferon-gamma DNA methylation is affected by mycophenolic acid but not by tacrolimus after T-cell activation. Front Immunol. 2017;8:822.
- Kraig E, et al. A randomized control trial to establish the feasibility and safety of rapamycin treatment in an older human cohort: immunological, physical performance, and cognitive effects. Exp Gerontol. 2018;105:53–69.
- Zhu C, et al. DNA methylation modulates allograft survival and acute rejection after renal transplantation by regulating the mTOR pathway. Am J Transplant. 2021;21(2):567–581.
- Wiencke JK, et al. DNA methylation as a pharmacodynamic marker of glucocorticoid response and glioma survival. Nat Commun. 2022;13(1):5537.
- Hsu FM, et al. DNA methylation predicts infection risk in kidney transplant recipients. Life Sci Alliance. 2025;8(7):e202403124. doi:10.26508/lsa.202403124.
- Bai JF, et al. Efficacy and safety of venetoclax and azacitidine for acute myeloid leukemia in China: a real-world single-center study. BMC Cancer. 2025;25(1):990.
- Arora S, et al. Tumor lysis syndrome and infectious complications during treatment with venetoclax combined with azacitidine or decitabine in patients with acute myeloid leukemia. Leuk Res. 2022;117:106844.
- Batra A, et al. Characteristics and survival of secondary acute myeloid leukemia from myelodysplastic syndromes in older adults: a population analysis. Clin Lymphoma Myeloma Leuk. 2025;25(6):e417–e423.
- Bai L, Hao X, Keith J, Feng Y. DNA methylation in regulatory T cell differentiation and function: challenges and opportunities. Biomolecules. 2022;12(9):1282.
- Trinh A, Huang Y, Shao H, et al. Targeting the ADPKD methylome using nanoparticle-mediated combination therapy. APL Bioeng. 2023;7(2):026111.
- Yuan N, Ma Z, Xue Z, et al. DNMT1-targeted macrophages delivering drug-loaded nanoparticles attenuate heart allograft fibrosis via PTPRD-STAT3/6 axis. Cell Death Discov. 2026. doi:10.1038/s41420-026-03295-5.
- Cameron J, Martino P, Nguyen L, Li X. Cutting edge: CRISPR-based transcriptional regulators reveal transcription-dependent establishment of epigenetic memory of Foxp3 in regulatory T cells. J Immunol. 2020;205(11):2953–2958.
- Liu XS, et al. Rescue of fragile X syndrome neurons by DNA methylation editing of the FMR1 gene. Cell. 2018;172:979–992.e6.
- Velut Y, Poulet G, Bersez T, et al. Epigenetic signatures on plasma cell-free DNA to detect kidney allograft rejection in a non-invasive way: development of a 10-plex digital PCR assay. Biomark Res. 2025;13:118.