يوفر هذا البروتوكول سير عمل عملياً وقابلاً للتكرار لمزامنة الخلايا المستنبتة، وإجراء أخذ عينات زمنية متداخلة على مدار 24–72 h دون الحاجة إلى الجمع طوال الليل، وتحليل تعبير جينات الساعة البيولوجية.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
الإيقاعات اليوماوية في طبق بتري: مزامنة خلايا mHypoE-42 من منطقة تحت المهاد لدى الفئران لتحليل تعبير جينات الساعة اليوماوية
في هذه المقالة
ملخص
الملخص
تعتبر الإيقاعات اليوماوية تذبذبات داخلية تستغرق 24 h تقريبًا وتنظم نطاقًا واسعًا من العمليات الخلوية والفسيولوجية، بما في ذلك التعبير الجيني، والتمثيل الغذائي، والسلوك. تنشأ هذه الإيقاعات من حلقات تغذية راجعة نسخية-ترجمية مترابطة تستجيب للإشارات الزمنية والبيئية. ونظرًا لأن التنظيم اليوماوي ديناميكي للغاية، فإن حتى الاختلافات التجريبية الطفيفة يمكن أن تؤثر على الطور والسعة والانتظام الإيقاعي، مما يجعل تدفقات العمل التجريبية الموحدة ضرورية لتوليد نتائج موثوقة وقابلة للتكرار. يهدف البروتوكول الحالي إلى توفير تدفق عمل عملي وقابل للتكرار لمزامنة الخلايا المستزرعة، وإجراء أخذ عينات زمنية، وتحليل التعبير عن جينات الساعة اليوماوية في ظل ظروف مختبرية قياسية. يصف البروتوكول المزامنة القائمة على صدمة المصل، وجمع العينات المتدرج على مدار 24–72 h لتجنب أخذ العينات طوال الليل، واستخلاص الحمض الريبوزي النووي (RNA)، وتخليق الحمض النووي الريبوزي منقوص الأكسجين المتمم (cDNA)، وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qPCR)، وتحليل الإيقاع اليوماوي باستخدام المناهج الإحصائية المناسبة. كما يسلط تدفق العمل الضوء على الاعتبارات التجريبية الحرجة، بما في ذلك ظروف المزامنة، وتقييم جودة العينات، واختيار الجينات المرجعية، وتحليل البيانات، لتحسين إمكانية التكرار عبر التجارب. توفر هذه الطريقة نهجًا ميسرًا لاستقصاء الآليات الجزيئية اليوماوية وتقييم التعبير الجيني الإيقاعي في الخلايا المستزرعة، مما يسهل دراسات التنظيم اليوماوي في النماذج التجريبية الفسيولوجية والمرتبطة بالأمراض.
المقدمة
تُعد الإيقاعات اليوماوية دورات داخلية المنشأ تبلغ مدتها 24 h تقريبًا، وتعمل على تنظيم مجموعة واسعة من العمليات الفسيولوجية والأيضية والخلوية1. وفي أنظمة الثدييات، يتم تنسيق هذه الإيقاعات بواسطة ساعة مركزية تقع في النواة فوق التصالبية (SCN) في منطقة تحت المهاد، وبواسطة ساعات جزيئية ذاتية الاستدامة على المستوى الخلوي. تتكون هذه الساعات من حلقات تغذية راجعة نسخية-ترجمية متداخلة تشمل جينات الساعة الأساسية، بما في ذلك البروتين المكون لدورات المخرجات الحركية اليوماوية Clock، والناقل النووي الشبيه بمستقبل الهيدروكربونات العطرية من نوع الحلزون-الحلقة-الحلزون الأساسي Bmal1، والبروتين (Per)، والكريبتوكروم (Cry)2. ونظرًا للدور المركزي للساعة اليوماوية في العمليات البيولوجية المتنوعة، أصبحت نماذج الخلايا in vitro أدوات مهمة لاستقصاء الآليات الجزيئية للتنظيم الزمني تحت ظروف تجريبية محكومة.
يهدف البروتوكول الحالي إلى توفير سير عمل موثوق وعملي وقابل للتكرار لمزامنة الخلايا المستزرعة باستخدام بروتوكول الصدمة المصلية، وإجراء أخذ عينات زمنية متدرجة، وتحليل تعبير جينات الساعة البيولوجية مع تجنب جمع العينات طوال الليل. ومن خلال تحسين جدوى أخذ عينات الإيقاع اليوماوي دون المساس بجودة البيانات، فإن سير العمل هذا يهدف إلى تسهيل دراسات العمليات البيولوجية الإيقاعية باستخدام التقنيات المختبرية القياسية.
أُجريت دراسات حول الإيقاع اليوماوي في مجموعة واسعة من النماذج in vitro، بما في ذلك الخطوط الخلوية لسرطانات البشر3، والخلايا الليفية rat-14، ومستنبتات SCN 5، والعضوانيات6. وعلى الرغم من أن معظم الخلايا الثديية تمتلك ساعات يوماوية وظيفية، فإن غياب إشارات المزامنة، مثل الضوء، يؤدي سريعاً إلى فقدان التزامن في المزارع الخلوية، مما يحد من دراسة الإيقاعات اليوماوية in vitro7. لذا، تُعد تقنيات المزامنة أساسية لاستقصاء آليات الساعة الجزيئية وتداعياتها على الصحة والمرض.
تم تطوير العديد من استراتيجيات المزامنة للخلايا الثديية المستزرعة. وتعد المزامنة القائمة على الجلوكوكورتيكويد باستخدام dexamethasone من بين النهج الأكثر استخداماً لأنها تعيد ضبط الإيقاعات اليوماوية بقوة في العديد من أنواع الخلايا مع تقليل بعض التباينات المرتبطة بتحفيز المصل8. وبالمثل، استُخدم تنشيط إشارات أحادي فوسفات الأدينوسين الحلقي بوساطة forskolin بنجاح لمزامنة الساعات الطرفية في نماذج خلوية مختارة9. وتشمل النهج الأخرى المعالجة بالإشارات المنقولة عبر الدم4، والمركبات الكيميائية المختلفة8,10، وتبديل الوسط الغذائي3، والصدمة الحرارية11، ودورات الأكسجين12، والتحفيز الميكانيكي13. وبشكل جماعي، ساهمت هذه الطرق في تطوير أبحاث الإيقاعات اليوماوية بشكل كبير؛ ومع ذلك، فقد تتطلب معدات متخصصة، أو ظروفاً تجريبية محددة، أو تحسيناً إضافياً، مما يجعل من المهم التحقق من صحة استراتيجية المزامنة المختارة لكل نموذج بيولوجي وتطبيق تجريبي14.
تعد صدمة المصل (Serum shock) واحدة من أكثر منهجيات المزامنة رسوخاً وانتشاراً، وتتمثل في تعريض الخلايا المستزرعة لمحفز من المصل بتركيز عالٍ لفترة قصيرة4. وبما أن هذا التحفيز يكون عابراً، فإن الاضطراب المطول في مسارات الإشارات الخلوية يكون في أدنى مستوياته4، مما يقلل من التأثيرات المربكة المحتملة على التحليلات اللاحقة. وبناءً على ذلك، تعد صدمة المصل مناسبة بشكل خاص للدراسات المتعلقة بالتعبير الجيني اليوماوي ووظيفة الساعة الجزيئية. بالإضافة إلى ذلك، فإن هذا الإجراء سهل التنفيذ ولا يتطلب معدات متخصصة، مما يجعله متاحاً وقابلاً للتكرار بسهولة في مختلف المختبرات. ومع ذلك، فإن أحد القيود العملية لتجارب صدمة المصل هو جدول أخذ العينات المكثف المطلوب لتحديد الإيقاع اليوماوي بدقة؛ إذ يتطلب التحليل الموثوق للإيقاع عادةً جمع العينات على فترات منتظمة، غالباً كل 2–6 h على مدار دورة يوماوية واحدة أو أكثر (24–72 h)14، وهو ما يستدعي في كثير من الأحيان جمع العينات خلال الليل.
يعالج سير العمل الموضح هنا هذا التحدي اللوجستي عن طريق توزيع توقيت بدء عملية المزامنة على عدة أطباق زراعة، مما يتيح إجراء أخذ عينات الساعة البيولوجية الكاملة خلال ساعات العمل القياسية مع تجنب جمع العينات طوال الليل. وبدلاً من تقديم استراتيجية مزامنة جديدة، يوفر هذا البروتوكول تنفيذاً مفصلاً وقابلاً للتكرار لطريقة صدمة المصل (serum shock) المعتمدة، مدمجة مع جدول زمني عملي لأخذ العينات وتحليل التعبير الجيني اللاحق. ويعد سير العمل هذا مناسباً بشكل خاص لدراسات التعبير الجيني للساعة البيولوجية في الخلايا المستنبتة باستخدام التقنيات المختبرية المتاحة على نطاق واسع. وعند تطويع هذا البروتوكول لنماذج خلوية إضافية، يجب تحسين والتحقق من المعايير التجريبية، بما في ذلك كثافة الخلايا، وظروف المزامنة، وفترات أخذ العينات، واختيار الجين المرجعي، بما يتناسب مع نوع الخلية المحدد قبل التنفيذ.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
يصف البروتوكول التالي طريقة مزامنة معتمدة لسلالة خلايا تحت المهاد الجنينية للفئران mHypoE-42. يجب التحقق من بروتوكول المزامنة وتحسينه بشكل مستقل قبل تطبيقه على أنواع أخرى من الخلايا المستنبتة. انظر الشكل 1 للحصول على نظرة عامة على سير العمل و الشكل التوضيحي التكميلي 1 لجدول أخذ العينات الأسبوعي. راجع الـ جدول المواد لكافة الكواشف والمعدات والأجهزة المستخدمة في هذا البروتوكول. تُجرى جميع إجراءات المزارع الخلوية داخل كابينة سلامة بيولوجية معتمدة باستخدام كواشف ومعدات معقمة.
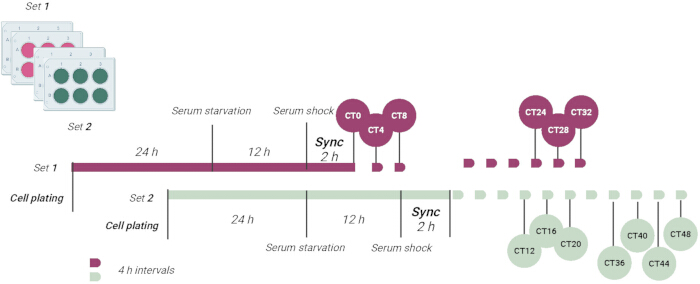
الشكل 1. نظرة عامة تخطيطية لبروتوكول التزامُن بالصدمة المصلية المتدرجة. يوضح المخطط سير العمل المستخدم لتزامُن خلايا mHypoE-42 عن طريق الصدمة المصلية في مجموعتين تجريبيتين متدرجتين. يتيح التصميم المتدرج جمع العينات اليومية خلال ساعات العمل القياسية مع تجنب أخذ العينات الليلية. تُعالج العينات لاحقاً لاستخلاص RNA، وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR)، وتحليل الإيقاع اليوماوي. تم الإنشاء بواسطة Biorender.com. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
1. زراعة الخلايا
- يتم استزراع خلايا mHypoE-42 الملتصقة في وسط Dulbecco’s Modified Eagle Medium (DMEM)، عالي الجلوكوز (4500 mg/L)، والمكمل بـ 10% (v/v) من مصل جنين البقر (FBS) المثبط حرارياً، و3.7 g/L من بيكربونات الصوديوم، و1% من محلول المضادات الحيوية.
- تُحفظ الخلايا عند درجة حرارة 37°C في حاضنة رطبة تحتوي على 95% هواء و5% ثاني أكسيد الكربون (CO2) باستخدام دوارق استزراع T75 بحجم استزراع نهائي قدره 10 mL.
ملاحظة: يجب اختبار كل تشغيلة جديدة من FBS قبل بدء التجارب نظراً لاحتمالية التباين بين تشغيلات المصل. - تُجرى عملية النقل الفرعي للخلايا عندما تصل نسبة التلاقي إلى 80%–90% تقريباً. تُغسل الخلايا باستخدام محلول ملحي منظم بالفوسفات (PBS; pH 7.4) معقم بتركيز 1×، ثم يُضاف 3 mL من محلول التربسين بتركيز 0.5%، وتُحضن لمدة 3–5 min لفصل الخلايا.
- يُضاف وسط استزراع كامل يحتوي على 10% (v/v) من FBS بحجم يعادل ضعف حجم التربسين على الأقل لتعادل مفعول التربسين.
- تُخفف الخلايا باستخدام وسط نمو جديد بنسبة تصل إلى 1:2.
ملاحظة: تجنب استخدام الخلايا التي خضعت لعمليات نقل مفرطة (على سبيل المثال، أكثر من 40 ممر لخلايا mHypoE-42). يجب تدفئة جميع المحاليل مسبقاً قبل الاستخدام، واختبار المزارع بانتظام للتأكد من خلوها من تلوث الميكوبلازما. - يتم البدء في اختبارات المزامنة بعد 24 h من زراعة الخلايا بكثافة 2.0 × 10⁵ خلية لكل بئر، كما هو موضح في الخطوة 2. وتُحفظ مزارع الخلايا الروتينية عند نسبة تلاقي تبلغ 80%–90% تقريباً قبل عملية النقل.
2. مزامنة خط الخلايا mHypoE-42
- تحضير الخلايا
- بعد عملية التربسين، قم بطرد الخلايا مركزياً عند 700 × g لمدة 5 min.
- تخلص من السائل الطافي وأعد تعليق كتلة الخلايا في 10 mL من وسط زرع طازج.
- امزج معلق الخلايا مع صبغة trypan blue بنسبة 1:1 (حجم كلي 20 μL) وحدد تركيز الخلايا باستخدام مقياس كرات الدم (hemocytometer).
ملاحظة: تخلص من المحاليل التي تحتوي على trypan blue وفقاً للإرشادات المؤسسية للتخلص من النفايات الكيميائية. لا تسكب الصبغة غير المستخدمة في الحوض.
- زراعة الخلايا وتصميم التجربة المتدرج
- ازرع 2.0 × 10⁵ خلية لكل بئر إما في أطباق ذات 6 آبار أو أطباق زرع بقطر 35-mm. حضن المزارع عند 37°C لمدة 24 h.
ملاحظة: ابدأ عملية المزامنة بالمصل بعد 24 h من استزراع الخلايا. وبناءً على ذلك، لا يشترط الوصول إلى درجة تلاقي خلوية محددة مسبقاً قبل المزامنة. بدلاً من ذلك، افحص المزارع مجهرياً للتأكد من أن الخلايا ملتصقة تماماً وتظهر مورفولوجيا مناسبة قبل بدء إجراء المزامنة. - قسم أطباق الزرع عشوائياً إلى مجموعتين تجريبيتين. استخدم المجموعة الأولى لإنشاء نقاط زمنية يوماوية (CT) وهي CT0 وCT4 وCT8 وCT24 وCT28 وCT32. واستخدم المجموعة الثانية لإنشاء CT12 وCT16 وCT20 وCT36 وCT40 وCT44 وCT48 (الشكل 1؛ الشكل التكميلي 1).
- زد عدد الآبار أو الأطباق حسب الحاجة لتشمل مكررات تقنية.
ملاحظة: قلل من التباين عن طريق تحضير جميع الأطباق من نفس معلق الخلايا، والحفاظ على كثافات استزراع وظروف زرع متطابقة، وإجراء المزامنة باستخدام نفس الكواشف والإعدادات التجريبية. عدل تنسيق وعاء الزرع وكثافة الزراعة حسب الحاجة لأنواع الخلايا الأخرى. عند استخدام أطباق ذات 6 آبار، ادمج الـ CTs التي يتم جمعها في وقت واحد لتحسين استخدام الطبق.
- ازرع 2.0 × 10⁵ خلية لكل بئر إما في أطباق ذات 6 آبار أو أطباق زرع بقطر 35-mm. حضن المزارع عند 37°C لمدة 24 h.
- المزامنة
- بعد 24 h، اشفط الوسط من المجموعة الأولى من الأطباق وأضف 1 mL من DMEM خالٍ من المصل. حضن لمدة 12 h لتحفيز تجويع المصل.
- حضر محلول مصل حصان بتركيز 50% (v/v) في DMEM عالي الجلوكوز مباشرة قبل الاستخدام.
- اشفط وسط التجويع من المجموعة الأولى وعرّض الخلايا لـ 1 mL من محلول مصل الحصان 50% المحضر حديثاً لمدة 2 h.
- في الوقت نفسه، اشفط الوسط من المجموعة الثانية من الأطباق واستبدله بـ 1 mL من DMEM خالٍ من المصل. حضن لمدة 12 h.
- بعد صدمة المصل لمدة 2-h، اشفط الوسط وأضف 1 mL من DMEM عالي الجلوكوز مضاف إليه 10% (v/v) من FBS مثبط حرارياً. حدد هذه النقطة الزمنية كـ CT0.
- جمع العينات
- ضع أطباق الزرع على الثلج. اشفط الوسط، واغسل الخلايا مرتين بـ 1 mL من 1× PBS معقم وبارد، وتخلص من محلول الغسيل، ثم حلل الخلايا ميكانيكياً باستخدام ما يصل إلى 1 mL من كاشف التحلل.
تنبيه: يحتوي كاشف التحلل على مواد كيميائية خطرة. قم بإجراء جميع خطوات المناولة في خزانة استخلاص كيميائية معتمدة مع ارتداء معدات الوقاية الشخصية المناسبة. تخلص من النفايات وفقاً للإرشادات المؤسسية للسلامة الكيميائية. - انقل كل ناتج تحلل إلى أنبوب معقم وخزن العينات عند −80°C حتى استخلاص RNA.
- كرر الخطوتين 2.4.1 و2.4.2 لجمع العينات عند CT4 وCT8.
- عند CT8، كرر الخطوة 2.3.2 للمجموعة التجريبية الثانية لمزامنة الخلايا الأخرى.
- بعد 2 h من صدمة المصل، أوقف مزامنة المجموعة التجريبية الثانية عن طريق استبدال الوسط بـ 1 mL من DMEM عالي الجلوكوز مضاف إليه 10% (v/v) من FBS مثبط حرارياً.
- اجمع العينات بالتناوب من المجموعتين التجريبيتين للحصول على CT12 وCT24 وCT16 وCT28 وCT20 وCT32. وفي اليوم التالي، كرر إجراء الجمع للحصول على CT36 وCT40 وCT44 وCT48.
ملاحظة: تم بدء تجويع المصل والمزامنة وفقاً للجدول الزمني التجريبي بعد استزراع الخلايا وليس عند درجة تلاقي خلوية محددة مسبقاً. تأكد من أن الخلايا ملتصقة تماماً وتظهر مورفولوجيا مناسبة قبل بدء المزامنة. على الرغم من أن نقاط CT المتتالية تختلف بمقدار 4 h، إلا أن عمليات الجمع لا تتم على فترات زمنية كل 4-h. ارجع إلى الشكل التكميلي 1 لمعرفة جدول الجمع الأسبوعي الكامل.
- ضع أطباق الزرع على الثلج. اشفط الوسط، واغسل الخلايا مرتين بـ 1 mL من 1× PBS معقم وبارد، وتخلص من محلول الغسيل، ثم حلل الخلايا ميكانيكياً باستخدام ما يصل إلى 1 mL من كاشف التحلل.
3. معالجة العينات: استخلاص الـ RNA
ملاحظة: قد تختلف البروتوكولات بناءً على السياق التجريبي والتطبيق. يصف سير العمل التالي مثالاً لإجراء فعال لاستخلاص RNA، وتخليق الحمض النووي المتمم (cDNA)، وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR). يتم استخلاص RNA الكلي باستخدام طريقة مشتركة تعتمد على التحلل بالفينول وفصل الطور، يليها التنقية باستخدام أعمدة الدوران السيليكية.
- تحضير العينات وفصل الأطوار
- قم بإذابة العينات، وأعد تجانس النواتج المتحللة، ثم حضنها في درجة حرارة الغرفة لمدة 5 min.
- أضف 200 μL من الكلوروفورم لكل 1 mL من كاشف التحلل.
تنبيه: الكلوروفورم مادة متطايرة وسامة. قم بإجراء جميع الخطوات التي تتضمن الكلوروفورم داخل غطاء سحب كيميائي معتمد مع ارتداء معدات الوقاية الشخصية المناسبة. - رج الأنابيب بقوة لمدة 15 s وحضنها في درجة حرارة الغرفة لمدة 3 min.
- قم بطرد مركزي للعينات عند 12,000 × g لمدة 15 min عند 4°C. اترك العينات لتنفصل إلى ثلاثة أطوار: طور الفينول-كلوروفورم السفلي الذي يحتوي على البروتينات، وطور بيني أبيض يحتوي على DNA، وطور مائي علوي غني بـ RNA.
- انقل الطور المائي بعناية إلى أنبوب معقم جديد دون المساس بالطور البيني. قم بتخزين الطور العضوي عند 4°C إذا كنت تخطط لعزل البروتين أو DNA لاحقاً.
ملاحظة: قم بإجراء عزل البروتين أو DNA وفقاً للبروتوكول المناسب إذا كانت هذه الجزيئات الحيوية ستُستخلص من الطور العضوي.
- تنقية RNA
- أضف حجماً مساوياً من الإيثانول بتركيز 70% (المحضر باستخدام ماء خالٍ من RNase) إلى الطور المائي، واستخدم جهاز المزج الدوامي (vortex) مرتين لمدة 15 s لتعزيز ارتباط RNA.
- ضع العينة في عمود دوران سيليكا (silica spin column) وقم بتنقية RNA وفقاً لسير عمل التنقية بالعمود.
- قم بهضم DNA الجينومي الملوث باستخدام DNase لمدة 15 min في درجة حرارة الغرفة.
- اغسل العمود باستخدام محاليل الغسيل المرفقة.
- قم بإجراء عملية غسل إضافية باستخدام 100 μL من محلول الغسيل، ثم قم بالطرد المركزي عند 11,000 × g لمدة 2 min لتجفيف غشاء السيليكا.
- انقل عمود الدوران إلى أنبوب طرد مركزي دقيق نظيف. استخلص RNA باستخدام 40–60 μL من الماء الخالي من RNase عن طريق وضع الماء مباشرة في مركز غشاء السيليكا والطرد المركزي عند 11,000 × g لمدة 1 min.
ملاحظة: اختر حجم الاستخلاص وفقاً لمحصول RNA والتركيز المطلوبين. عادةً ما يوفر حجم استخلاص قدره 60 μL استعادة أكثر اكتمالاً لـ RNA من غشاء السيليكا، ولكنه ينتج محلول RNA أكثر تخفيفاً. وفي المقابل، فإن حجم الاستخلاص البالغ 40 μL ينتج تحضيراً أكثر تركيزاً لـ RNA ولكن قد يقلل من إجمالي استعادة RNA. قم بتحسين حجم الاستخلاص وفقاً لتوصيات الشركة المصنعة ومتطلبات التطبيقات اللاحقة.
- تقييم جودة RNA
- ضع عينات RNA على الثلج وانقل 5 μL من كل عينة إلى أنبوب طرد مركزي دقيق معقم جديد لتقييم الجودة.
- قيم سلامة RNA باستخدام إما الفصل الكهربائي لهلام الأغاروز بتركيز 1.5% أو الفصل الكهربائي الشعيري. تأكد من وجود حزم متميزة لـ RNA الريبوسومي 28S و18S.
- حدد تركيز ونقاء RNA عن طريق قياس الامتصاص باستخدام جهاز المطياف الضوئي.
ملاحظة: تخلص من النفايات التي تحتوي على الفينول وفقاً لإرشادات المؤسسة للتخلص من النفايات الكيميائية. لا تتخلص من النفايات الكيميائية الخطرة في الحوض. بالنسبة لعينات الخلايا المستزرعة، تتراوح تركيزات RNA عادةً بين 200 و1000 ng/μL وتكون مناسبة لتخليق cDNA وqRT-PCR. اقبل عينات RNA التي تتراوح فيها نسبة A260/230 بين 2.0 و2.2 ونسبة A260/280 حوالي 2.0 (انظر الجدول التكميلي 1).
- تخزين RNA
- خزن عينات RNA المنقاة عند −80°C حتى يتم تخليق cDNA.
4. معالجة العينة: تخليق cDNA
ملاحظة: قم بتخليق cDNA من 1 μg من RNA الكلي باستخدام طقم تخليق cDNA للسلسلة الأولى. اضبط أحجام التفاعل وظروف الحضن وفقاً لتعليمات الشركة المصنعة.
- النسخ العكسي
- أذب عينات الـ RNA على الثلج. قم بتحضير تفاعل نسخ عكسي بحجم 20 μL يحتوي على 1 μg من الـ RNA الكلي، و10 μL من المزيج الرئيسي (Master Mix) بتركيز 2× (يحتوي على مثبط الريبونوكلياز، وسداسيات عشوائية، وبادئات oligo(deoxythymidine)، وأيونات المغنيسيوم [Mg2+]، وثلاثي فوسفات ديوكسي نيوكليوتيد)، و2 μL من مزيج الإنزيم (الذي يحتوي على إنزيم النسخ العكسي)، وماء معالج بـ diethyl pyrocarbonate حتى يصل الحجم النهائي إلى 20 μL.
- حضّن التفاعل في جهاز الدورات الحرارية لمدة 10 min عند 25°C لتهجين البادئات، يليه 30 min عند 50°C لتخليق الـ cDNA. قم بتعطيل إنزيم النسخ العكسي عن طريق تحضين التفاعل عند 85°C لمدة 5 min.
- أضف 1 μL من RNase H وحضّن التفاعل لمدة 20 min عند 37°C لتحلل شريط الـ RNA في هجين RNA–DNA.
- خفف تحضير الـ cDNA بنسبة تصل إلى 1:20 باستخدام ماء معقم، وفقاً لمتطلبات تحسين المقايسة، وخزّن الـ cDNA المخفف عند −20°C لحين إجراء تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR).
5. معالجة العينات: تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR)
ملاحظة: قم بقياس تعبير جينات الساعة البيولوجية باستخدام تقنية qRT-PCR. يرجى الرجوع إلى الجدول التكميلي 2 لمعرفة تسلسلات البادئات المعتمدة، ودرجات حرارة الارتباط، وتركيزات البادئات.
- تحسين المقايسة
- التحقق من تركيز البادئ، ودرجة حرارة التلدين، وكمية cDNA المُضافة وتحسينها باستخدام عينات cDNA مجمعة ومنحنى قياسي قبل تحليل العينات التجريبية. يتم إجراء تحسين المقايسة والتحقق من صحتها كما هو موضح سابقاً15,16.
- إعداد التفاعل
- تحضير كل تفاعل qRT-PCR بحجم 10 μL عن طريق دمج 5 μL من المزيج الرئيسي 2× master mix، و0.4 μL من كل من البادئين الأمامي والعكسي، و0.2 μL من الماء المعالج بـ diethyl pyrocarbonate، و4 μL من قالب cDNA في لوح PCR ذي 96 بئراً.
- إغلاق اللوح بغشاء إحكام شفاف بصرياً أو حصيرة إحكام. يتم طرد اللوح مركزياً عند 700 × g لمدة تصل إلى 5 min عند 4°C لإزالة الفقاعات وتجميع مزيج التفاعل في قاع كل بئر.
- تحليل جميع عينات cDNA لتحديد تعبير الجينات المستهدفة Bmal1 وPer2.
- تحليل الجين المرجعي المختار (B2m) باستخدام نفس تخفيف cDNA لتقييس التعبير الجيني عبر العينات.
- الدورات الحرارية
- إجراء qRT-PCR باستخدام ظروف الدورات التالية: المسخ الأولي وتنشيط DNA polymerase ذو البداية الساخنة (hot-start) عند 95°C لمدة 2 min، تليها 39 دورة عند 95°C لمدة 5 s و60°C لمدة 30 s.
- إجراء تحليل منحنى الانصهار عن طريق تسخين التفاعلات إلى 95°C لمدة 5 s، تليها زيادات تدريجية بمقدار 0.5°C وصولاً إلى 95°C، مع التثبيت لمدة 5 s عند كل زيادة.
ملاحظة: يتم ضبط أوقات التثبيت وإعدادات منحنى الانصهار وفقاً لتوصيات المزيج الرئيسي عند الحاجة.
- التحقق من صحة الجين المرجعي
ملاحظة: في تجارب التزامن المصلية، يتم تقييم الجينات المرجعية المرشحة لأن المعالجة بالمصل قد تغير تعبير الجينات التدبيرية (housekeeping genes)17. يتم تقييم استقرار التعبير باستخدام طرق مثل BestKeeper18، أو geNorm19، أو NormFinder20، أو طريقة ΔCt المقارنة21. يتم اختيار الجين أو الجينات الأكثر استقراراً للتقييس. في هذه الدراسة، تم تقييم β-actin (Actb) و β-2-microglobulin (B2m) باستخدام برنامج RefFinder22، الذي يدمج خوارزميات متعددة للتحقق من صحة الجينات المرجعية. وأظهر جين B2m أكبر استقرار في التعبير عبر المخطط الزمني اليوماوي، وبالتالي تم اختياره للتقييس. - التحقق من المنتج
- التحقق من نوعية التضخيم عن طريق تحليل نواتج PCR باستخدام الرحلان الكهربائي لهلام الأغاروز بتركيز 2%.
ملاحظة: تحديد درجة حرارة التلدين المثلى عن طريق اختبار درجات حرارة متعددة (على سبيل المثال، 58 °C، و60°C، و62°C). يتم اختيار درجة الحرارة التي تعطي أقل قيمة لدورة التكميم (Cq) مع الحفاظ على قمة واحدة في منحنى الانصهار دون وجود دليل على تكوين بادئ-ثنائي (primer-dimer).
ملاحظة: تُقبل المقايسات التي تتراوح كفاءات التضخيم فيها بين 90% و110% مع معامل تحديد (R2) يبلغ 0.99 أو أكثر. يتم التأكد من أن درجات حرارة الانصهار لا تختلف بأكثر من 0.5°C بين المكررات التقنية. تُقبل فقط المكررات التقنية التي يكون الفرق في Cq لها ≤0.5 للتحليل، وتُستخدم هذه القيم لحساب متوسط مستويات التعبير. تُجرى جميع التفاعلات في مكررات تقنية (مثل ثلاث مكررات) مع تضمين كل من ضابط بدون قالب وضابط بدون نسخ عكسي.
- التحقق من نوعية التضخيم عن طريق تحليل نواتج PCR باستخدام الرحلان الكهربائي لهلام الأغاروز بتركيز 2%.
6. تحليل البيانات
- تحليل التعبير الجيني
- قم بحساب متوسط المكررات التقنية لكل عينة قبل إجراء التحليلات اللاحقة.
- احسب قيمة ΔCq لكل عينة ونقطة زمنية باستخدام المعادلة التالية:
Δدورة العتبة (Cq) = دورة العتبة (Cq)الجين المستهدف - دورة العتبة (Cq)جين التدبير المنزلي - احسب قيمة ΔΔCq لكل عينة وكل نقطة زمنية باستخدام المعادلة التالية:
ΔΔدورة العتبة (Cq) = Δدورة العتبة (Cq)عينة - Δدورة العتبة (Cq)عنصر تحكم
ملاحظة: لحساب ΔΔCq و ΔCqمجموعة ضابطة عُرِّفَت بأنها متوسط قيمة ΔCq التي تم الحصول عليها من خلال حساب متوسط جميع عينات التحكم عبر جميع دورات العتبة (CTs). - تقييم المعلمات اليوماوية، بما في ذلك إحصائية خط الوسط لتقدير الإيقاع (MESOR)، والسعة، والذروة، والطور، باستخدام برنامج CircaCompare23أجرِ التحليل باستخدام إما التطبيق المتاح عبر الإنترنت أو حزمة R البرمجية.
- تحليل CircaCompare عبر الإنترنت
ملاحظة: يُظهر التنفيذ عبر الإنترنت تقديرات المعلمات اليوماوية الكاملة فقط عندما تستوفي مجموعة البيانات المعايير الإحصائية للإيقاعية. وفي حال كانت الإيقاعية ضعيفة أو غير ذات دلالة إحصائية، استخدم تنفيذ لغة R للحصول على تقديرات المعلمات لجميع مجموعات البيانات.- قم بإعداد ملف قيم مفصولة بفاصلة (.csv).
- أدخل متغير الوقت (رقمي؛ بالساعات) في العمود 1.
- أدخل متغير التجميع (مجموعتين تجريبيتين فقط) في العمود 2.
- أدخل متغير النتيجة (رقمي؛ ΔΔCq) في العمود 3.
- قم بتحميل ملف .csv إلى تطبيق CircaCompare عبر الإنترنت.
- قم بتعيين متغيرات الوقت والمجموعة والنتيجة في الأعمدة المقابلة.
- اختر "تشغيل" (Run) لإجراء التحليل.
- قم بإعداد ملف قيم مفصولة بفاصلة (.csv).
- تحليل CircaCompare في برنامج R
- أجرِ التحليل باستخدام برنامج R الإصدار 4.5.1 وحزمة CircaCompare الإصدار 0.2.024.
- ثبّت حزم R المطلوبة.
- قم بتثبيت حزمة devtools (الإصدار 2.5.2).
- قم بتثبيت حزمة circacompare (الإصدار 0.2.0).
- ثبّت حزمة ggplot2 (الإصدار 4.0.3).
- قم بتثبيت حزمة svglite (الإصدار 2.2.2).
- قم بتحميل ملف .csv المدخل.
- قم بإجراء تحليل CircaCompare بعد ضبط قيمة alpha_threshold = 1.
ملاحظة: يؤدي ضبط alpha_threshold = 1 إلى تقديم تقديرات لمعاملات الإيقاع اليوماوي لجميع التذبذبات المجهزة بغض النظر عن الدلالة الإحصائية. ومع ذلك، فإن التذبذبات ذات الـ القيمة الاحتمالية (p-value) < يجب تفسير القيمة 0.05 على أنها إيقاعية وذات دلالة إحصائية. - تخصيص الملف التكميلي 1 قبل تنفيذ السكربت.
- استبدل "XXX.csv" باسم ملف بيانات الإدخال.
- استبدل "YYY.csv" باسم ملف النتائج المطلوب.
- استبدل "ZZZ.svg" باسم ملف المخطط المطلوب.
- اضبط حدود المحور الصادي (حدود محور الصادات) وأي معاملات رسم بياني إضافية وفقًا لمجموعة البيانات.
- راجع الجدول التكميلي 3 لملف إدخال نموذجي.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
يُستدل على نجاح المزامنة من خلال وجود إيقاع يومي ذي دلالة إحصائية لجينات الساعة التي تم تحليلها تحت حالة الضبط (p < 0.05). في هذه الدراسة، أُجريت ثلاث تجارب بيولوجية مستقلة، مع استخدام 0.1% من dimethyl sulfoxide كضابط سلبي. تم اختيار Bmal1 و Per2 كعلامات إيقاع يومي ممثلة لأنهما مكونان أساسيان في الساعة البيولوجية الجزيئية ويظهران نمط تعبير تضادي الطور وموصوف بدقة. تظهر ملفات التعبير الإيقاعي الممثلة التي تم الحصول عليها بعد المزامنة في الشكل 2. كما لُخصت معايير ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
تُعد الإيقاعات اليوماوية دورات داخلية تبلغ مدتها 24 h تقريباً، وتعمل على تنظيم مجموعة واسعة من العمليات الفسيولوجية والأيضية والخلوية من خلال آليات ساعة جزيئية محفوظة1,2. وتوفر نماذج المزامنة In vitro بيئة تجريبية محكومة لاستقصاء هذه الآليات، وقد أصبحت أدوات قيمة لدراسة التنظيم اليوماوي في الظروف الطبيعية والمرضية، بما في ذلك التعرض للملوثات البيئية والاضطرابات التجريبية الأخرى25. يصف البروتوكول المعروض هنا سير عمل عملي لمزامنة ال...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
شكر وتقدير
تم تمويل هذا العمل بشكل مشترك من قبل مرفق التعافي والمرونة التابع للاتحاد الأوروبي (EU) والصناديق الوطنية البرتغالية من خلال FCT – Fundação para a Ciência e a Tecnologia بموجب المشاريع LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020)، وUID/04539/2025، وUID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025)، وUID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025)؛ ومن قبل الصندوق الأوروبي للتنمية الإقليمية (ERDF) من خلال البرنامج العملياتي الإقليمي Centro 2030 بموجب المشروع CENTRO2030-FEDER-02360200؛ ومن قبل الصناديق الوطنية البرتغالية من خلال FCT بموجب المنح 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT)، و2023.12355.PEX (DOI: 10.54499/2023.12355.PEX)، و2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008)، و2020.04850.BD (DOI: 10.54499/2020.04850.BD)، و2021.05334.BD (DOI: 10.54499/2021.05334.BD).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| طبق زراعة خلايا ذو 6 آبار | نيست بايوتكنولوجي (Nest Biotechnology) | 15140122 | طبق زراعة الخلايا |
| أجاروز | NZYtech | MB02702 | تقييم جودة الحمض النووي الريبوزي (RNA) |
| مزيج مضادات حيوية (بنسلين/ستربتومايسين) | Gibco, Thermo Fisher Scientific | D5648 | مكمل المزارع الخلوية |
| طقم تخليق الحمض النووي الريبوزي منقوص الأكسجين المتمم (الشريط الأول) | NZYtech | MB12502 | النسخ العكسي |
| كلوروفورم | Sigma-Aldrich | A5256701 | كاشف فصل الطور |
| وسط DMEM، جلوكوز مرتفع (4500 ملجم/لتر جلوكوز، L-glutamine) | Sigma-Aldrich | 26050088 | وسط استزراع الخلايا |
| أنابيب طرد مركزي دقيقة من نوع Eppendorf | Eppendorf | 30120086 | تخزين العينات |
| إيثانول (96%) | Fisher Bioreagents | 15552393 | تنقية الحمض النووي الريبوزي (RNA) |
| مصل جنين البقر، مثبط حرارياً | Gibco, Thermo Fisher Scientific | J62692.K7 | مكمل المزارع الخلوية |
| لوح PCR ذو قشرة صلبة بـ 96 بئراً | Bio-Rad Laboratories | HSP9601 | لوحة تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) |
| مصل خيل، مثبط حرارياً | Gibco, Thermo Fisher Scientific | 15400054 | مزامنة الصدمة المصلية |
| خط الخلايا mHypoE-42 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | خط خلوي لخلايا منطقة تحت المهاد من جنين الفأر |
| بادئات قليلة النوكليوتيد | NZYtech | MB12501 | بادئات تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) |
| محلول ملحي منظم بالفوسفات (PBS) | Thermo Fisher Scientific | MB18502 | غسيل الخلايا |
| مزيج qPCR Green الرئيسي (2×) | NZYtech | MB22403 | كاشف تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) |
| نظام الكشف بتقنية تفاعل البوليميراز المتسلسل في الوقت الحقيقي (Real-time PCR) | Bio-Rad Laboratories | يبدو أن النص المقدم "EP0030108116" هو رمز تعريفي أو رقم مرجعي وليس نصاً علمياً قابلاً للترجمة. يرجى تزويدي بالنص المراد ترجمته. | جهاز تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) |
| طقم استخلاص الحمض النووي الريبوزي (RNA) | NZYtech | 288306 | تنقية باستخدام أعمدة الدوران السيليكية |
| كاشف تحلل الحمض النووي الريبي (RNA) | NZYtech | MB18502 | كاشف استخلاص الحمض النووي الريبوزي القائم على الفينول |
| بيكربونات الصوديوم | Sigma-Aldrich | MB22401 | مكمل وسط المزارع الخلوية |
| طبق زراعة معقم بقطر 35 مم | Thermo Fisher Scientific | 121 فولت | طبق زراعة الخلايا |
| جهاز التدوير الحراري T100 | Bio-Rad Laboratories | 1861096 | تخليق الحمض النووي الريبوزي منقوص الأكسجين المتمم (cDNA) |
| قارورة زراعة أنسجة T75 | Corning | 430641U | وعاء زراعة الخلايا |
| محلول صبغة تريبان الزرقاء (0.4%) | Gibco, Thermo Fisher Scientific | 15250061 | عد الخلايا |
| تريبسين-إيديتات ثنائي الصوديوم (0.5%) | Gibco, Thermo Fisher Scientific | 15400054 | تفكيك الخلايا |
المراجع
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً