نحن نصف خطوط التصوير الكونفوكالي وتتبع الخطوط المطبقة على استراتيجيتين للتقرير: العضويات الفسيفسائية لتحليل سلوك الخلايا الفردية وعضويات تقرير المصير لمراقبة انتقالات أنواع الخلايا في الأعضاء المعوية البشرية والفئرانية.
مقالة منهجية
تصوير الخلايا الحية وتتبع الخلية المفردة لمراقبة ديناميكيات الاستنساخ وانتقالات المصير في الأعضاء المعوية البشرية والفئران
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تخضع الظهارة المعوية لتجديد ذاتي سريع من خلال انقسام الخلايا الجذعية، وتمايز الخلايا، والهجرة. فهم كيفية التزام الخلايا الفردية بمصائر محددة وكيف تظهر ديناميكيات الاستنساخ داخل هذا النسيج يتطلب طرقا تلتقط سلوك الخلية في الوقت الحقيقي وبدقة خلية واحدة. تعيد عضويات الأمعاء السمات الرئيسية لتنظيم الظهارة الذاتية وتنوع أنواع الخلايا، مما يجعلها نظاما قويا لدراسة هذه العمليات في بيئة مضبوطة. نقدم هنا بروتوكولا لتصوير الخلايا الحية الكونفوكالي طويل الأمد (حتى 72 ساعة) وتتبع الخلايا المفردة في الأعضاء المعوية البشرية والفأرية، مبنية على استراتيجيتين مكملتين للتقرير. أولا، نصف توليد العضويات الفسيفسائية من خلال دمج مجموعات الخلايا الموسومة بشكل مختلف، مما يتيح حل الخلايا المفردة للمبلغين الموضعين في الغشاء والهيكل الخلوي الذي لا يمكن نسبته إلى خلايا فردية في ظهارة كثيفة. ثانيا، نستخدم مبلغات مصير محددة لنوع الخلية (MUC2 لخلايا الكأس وDEFA5 لخلايا بانيث) لمراقبة انتقالات نوع الخلايا الإفرازية في الوقت الحقيقي. يغطي البروتوكول زراعة العضويات، وتكوين الفسيفساء العضوية، وتحضير العينات مع استراتيجيات لتقليل السمية الضوئية، والتقاط الصور على مدى عدة أيام، والتتبع شبه الآلي لخلية واحدة باستخدام OrganoidTracker، الذي يعيد بناء مسارات الخلايا وسلالات الخلايا مع مرور الوقت. على الرغم من إثبات ذلك في الأعضاء الحيوانية المعوية، فإن هذا الإطار قابل للتكيف بسهولة مع أنظمة عضوية ظهارية أخرى، بما في ذلك نماذج المعدة والبنكرياس والقولون، مما يوسع فائدته في دراسات بيولوجيا الظهارة، والتوازن الداخلي، والأمراض.
المقدمة
الظهارة المعوية هي واحدة من الأنسجة التي تتجدد ذاتيا بسرعة في الجسم، حيث يتم استبدال معظم الخلايا خلال ثلاثة إلى خمسة أيام. يحافظ هذا التحول المستمر على خلايا جذعية إيجابية تحتوي على مستقبلات G المتكررة المعتمدة من بروتين G 5 (Lgr5) الموجودة في قاعدة القنابات المعوية، والتي تنتج أسلاف مضخمة للعبور تتمايز إلى أنواع الخلايا المتخصصة في بطانة الأمعاء أثناء هجرتها نحو طرف الزغابات1. تشمل السلالات الرئيسية المتمايزة الخلايا المعوية الماصة، وخلايا الكأس التي تفرز المخاط، والخلايا المعوية الصماء المنتجة للهرمونات، وخلايا بانيث المضادة للميكروبات2. تظل كيفية التزام الخلايا الفردية بمصائر محددة، وكيف ينشأ السلوك الجماعي للخلايا من ديناميكيات الخلايا الفردية، وكيفية تحقيق التنسيق على مستوى الأنسجة، أسئلة أساسية في علم الأحياء المعوي. يتطلب الإجابة على هذه الأسئلة مناهج تجريبية تلتقط سلوك الخلية بدقة خلية واحدة، وفي الوقت الحقيقي، وعلى مدى الزمن ذي الصلة بالتمايز والهجرة3.
تعيد العضويات المعوية، وهي هياكل ثلاثية الأبعاد ذاتية التنظيم (ثلاثية الأبعاد) تنمو من خلايا جذعية فردية أو شظايا أنسجة، جوانب رئيسية من بنية الظهارة، والتنظيم الذاتي، وتنوع أنواع الخلايا 4,5,6. منذ تطورها، أصبحت العضوية أداة لا غنى عنها لدراسة بيولوجيا الأمعاء، ونمذجة الأمراض، واستجابات الأدوية. يمكن الحفاظ على كل من العضويات في الفأر والإنسان على المدى الطويل في الزرعة، وتعديلها وراثيا باستخدام طرق تعتمد على تكرارات الباليندروميك القصيرة المتباعدة بانتظام (CRISPR)، ودمجها في هياكل فسيفسائية عن طريق خلط خلايا منفردة منفصلة من أنماط جينية مختلفة أو خلفيات مراسل قبل إعادة التضمين في مستخلص الغشاء القاعدي 7,8,9. تجمع العضويات الفسيفسائية خلايا ذات خلفيات جينية أو فلورية مميزة ضمن بنية واحدة، بحيث تعيش المجموعات إشارات مميزة وسياق ميكانيكي متطابقة ويمكن مقارنتها مع ضوابط داخلية مدمجة. هذه القابلية للانتقال الجيني تجعلها مناسبة بشكل خاص للدراسات التصويرية الحية التي تتطلب تصنيفا دقيقا لمجموعات الخلاياالمحددة 6,10,11,12. المراسلون الذين يصنفون الخلايا بشكل متقطع، مثل علامات المصير الخاصة بنوع الخلية، ينتجون خلايا فلورية معزولة يمكن تتبعها وتحليلها بشكل فردي عبر طرق تتبع خلية واحدة. ومع ذلك، ينشأ تحد مستمر عندما يتم تمييز البروتينات الموضعية في الغشاء والبروتينات الهيكلية الخلوية، مثل وصلات الخلايا أو الميوسين-II القشري، بشكل موحد عبر الظهارة. لا يمكن تخصيص إشاراتها لخلايا فردية لأن الخلايا المجاورة تشترك في حدودها عند دقة المجهر الكونفوكلي. تتغلب العضويات الفسيفسائية على هذا القيد: عندما تحيط الخلية التي تعبر عن مراسل فلوري بجيران غير معنونين، يمكن نسب إشاراتها الغشائية والهيكلية الخلوية بشكل لا لبس فيه إلى تلك الخلية الواحدة، مما يكشف كيف تعيد تشكيل هيكلها الخلوي أثناء الهجرة أو الانقسام أو البثق 9,13. تعديل نسبة التصنيف يعكس هذا العرض، مما يسمح بالتقاط استجابة الجوار حول خلية غير معنونة بدلا من ذلك. تعمل مراسلات هيستون H2B النووية مثل H2B-mCherry أو H2B-iRFP كأدوات لتحديد نمط الفسيفساء وتحديد كوكبات الخلايا المعلوماتية للتحليل. بعيدا عن دقة الخلية الواحدة، تمكن العضويات الفسيفسائية أيضا من مقارنات اللياقة المباشرة بين الأنماط الجينية: نظرا لأن كلا المجموعتين تشتركان في نفس المكان، توفر الفروق في عمر الخلايا أو معدل البثق قراءة داخلية محكمة للياقة التنافسية 9,14,15.
ومع ذلك، فإن تصوير الخلايا الحية للعضويات يطرح تحديات تقنية محددة. تتطلب هندستها ثلاثية الأبعاد المجهر الكونفوكلي أو الصفائح الضوئية للتقسيم البصري16، 17، 18، 19. التقاط العمليات البطيئة مثل التمايز والهجرة يتطلب فترات تصوير تصل إلى 24 ساعة أو أكثر، مع تحسين دقيق لقوة الليزر ووقت التعريض وفترات التصوير للحد من السمية الضوئية16,18. يجب أن تدعم مصفوفة التضمين ووسط الزراعة صحة العضوية مع البقاء متوافقة مع بصريات المجهر. علاوة على ذلك، يتطلب استخراج معلومات كمية لخلية واحدة من مجموعات بيانات ثلاثية الأبعاد كثيفة ذات الفاصل الزمني أدوات حسابية مخصصة لاكتشاف وربطها عبر مئات النقاط الزمنية. بعيدا عن المجهر الكونفوكلي والمجهر الخفيف الصفائح، تقدم المجهر متعدد الفوتونات والمجهر الافتراضي مدى الحياة بالفلورة (FLIM) قدرات إضافية مثل تقليل السمية الضوئية وقراءة الأيض الخالية من المسميات20,21، رغم أن المجهر الكونفوكلي يظل المنصة الأكثر وصولا وتنوعا للتصوير الحي متعدد الألوان للعضويات الموسومة بالفلورية.
تم تطوير عدة طرق لتتبع الخلايا في العضويات، تتراوح من التعليقات اليدوية إلى خطوط أنابيب التعلم العميق شبه المؤتمتة والآلية بالكامل22. OrganoidTracker هو أداة برمجية شبه آلية تستخدم الشبكات العصبية لاكتشاف النوى في أكوام كونفوكال ثلاثية الأبعاد وتربط الاكتشافات عبر نقاط زمنية لإعادة بناء مسارات الخلايا وأشجار النسب3،23. تم التحقق من صحتها لتتبع مئات الخلايا على مدى عدة أيام في العضويات المعوية وتوفر إطارا مرنا لقياس انقسام الخلية والهجرة والتمايز والبثق. دعمه للتصوير متعدد القنوات يجعله متوافقا مباشرة مع كل من العضويات الفسيفسائية التي تحمل مراسلات نووية مميزة طيفيا وعضويات تعبر عن علامات مصير خاصة بنوع الخلية.
في هذا البروتوكول، نصف سير عمل معياري يدمج التصوير الكونفوكالي للخلايا الحية وتتبع الخلية الواحدة مع استراتيجيتين مكملتين للإبلاغ في الأعضاء المعوية البشرية والفأرية. تستخدم الاستراتيجية الأولى عضويات الفروساء الفسيفسائية الناتجة عن خلط مجموعتين من الخلايا تحملان مقاربات نووية مميزة H2B (H2B-mCherry و H2B-iRFP) بنسب محددة (الشكل 1A). تحمل إحدى المجموعات أيضا مراسلا مشتركا يثير الاهتمام، مثل Myosin-II-mNeonGreen، حيث يمكن نسب إشارته الموضعية في الغشاء بشكل لا لبس فيه إلى خلايا فردية عندما تكون محاطة بجيران يحملون المسممة النووية الثانية فقط. يتيح ذلك الملاحظة المباشرة لكيفية إعادة تشكيل خلية واحدة لهيكلها الخلوي أثناء الهجرة أو الانقسام أو البثق داخل نسيج سليم. تستخدم الاستراتيجية الثانية مبلغي مصير محددين لنوع الخلية في الأعضاء المعوية البشرية، حيث يستخدم موسين 2 (MUC2) لتصنيف خلايا الكأس، وديفينسين ألفا 5 (DEFA5) لوضع علامات على خلايا بانيث، مما يتيح مراقبة انتقالات أنواع الخلايا الإفرازية في الوقت الحقيقي (الشكل 1B). معا، يوضح هذان النظامان كيف يمكن تكييف خط أنابيب التصوير والتتبع المشترك لمعالجة أسئلة بيولوجية متنوعة ببساطة عن طريق تبديل استراتيجية المراسل (الشكل 1C,D). الأقسام التالية تقدم جميع الخطوات اللازمة لتنفيذ هذا سير العمل، من زراعة الأعضاء مرورا بتوليد الفسيفساء، واكتساب الصور، والتحليل الكمي لخلية واحدة.
البروتوكول
تم إجراء جميع التجارب التي شملت الحيوانات وفقا للإرشادات المؤسسية المعتمدة من اللجنة المركزية لتجارب الحيوانات (CCD) التابعة للحكومة الهولندية وهيئة رعاية الحيوانات التابعة ل KNAW/معهد هوبريخت (IvD). تم توليد عضويات معوية بشرية من أنسجة مريض تم الحصول عليها من المركز الطبي الجامعي في أوتريخت (UMCU) بموافقة مستنيرة من المريض. تمت الموافقة على الدراسة من قبل لجنة الأخلاقيات في جامعة UMCU (أوترخت، هولندا) وأجريت وفقا لإعلان هلسنكي والقانون الهولندي.
1. زراعة وصيانة العضوية
- تحضير وسط نمو عامل النمو البشري، نوجين، وR-سبوندين (ENR) لأعضاء الأمعاء في الفأر (الجدول 1).
- تحضير وسط التمدد (الجدول 2)، ووسط النمط (الجدول 3)، ووسط النضج (الجدول 4) للعضويات المعوية البشرية.
- قم بإذابة قارورة مستخلص الغشاء القاعدي منخفض عامل النمو (BME) على الثلج طوال الليل قبل الاستخدام.
- دائما احتفظ ب BME على البرودة لمنع التجلي المبكر.
- زراعة عضويات الأمعاء في وسط ENR المدمج في الطب الحيوي الحيوي، تمر كل 7 أيام بنسبة تقسيم 1:4 إلى 1:8 بواسطة التفكك الميكانيكي4.
- زراعة الأعضاء المعوية البشرية في وسط تمدد مدمجة في الطب الحيوي الحيوي، تمر كل 7–10 أيام5.
ملاحظة: لتوسيع أو استعادة عضويات الفأر بعد تفكك الخلية الواحدة، يتم تغذية الزراعة في وسط ENR بوسط مكيف ب Wnt (مكمل ب 10 ملليموتر نيكوتيناميد و10 ميكرومولار Y-27632 ديهيدروكلوريد) خلال أول 2-3 أيام لتعزيز نمو العضويات وقابليتها للبقاء وحيويته. - لتحفيز تمايز الأعضاء المعوية البشرية، يتم زراعة الأعضاء العضوية بشكل متسلسل في وسط النمط لمدة 14 يوما، تليها وسط النضج لمدة 7–10 أيام6.
ملاحظة: للحصول على بروتوكولات تفصيلية لتكوين وزراعة العضويات، راجع Sato وآخرون 4 للعضويات المعوية في الفئران، وساتو وآخرون 5 و He وآخرون6 للعضويات المعوية البشرية.
2. توليد الأعضاء المعوية المعدلة وراثيا
- عضويات المرور لضمان تكاثر نشط للثقافات في وقت التثقيف الكهربائي: ثلاثة أيام قبل التثقيف الكهربائي للعضويات الفأرية وخمسة إلى سبعة أيام للعضويات البشرية. لكل تفاعل تثقيف كهربائي، استخدم عضويات من 4–8 آبار من صفيحة تحتوي على 24 بئر (حوالي 200–400 ميكرولتر من العضويات التي تحتوي على BME، مما ينتج حوالي 500–1000 عضو). تفكك الأعضاء إلى خلايا منفردة باستخدام كاشف تفكك يشبه التريبسين المؤتلف، لمدة 5–10 دقائق عند درجة حرارة 37 درجة مئوية.
- توليد خطوط عضوية للإبلاغ النووي عن طريق التوصيل الكهربائي المشترك لبناء تعبير قائم على النقل الترانسبوزيني (p2T-H2B-mCherry-IRES-BlastR أو p2T-H2B-iRFP-IRES-PuroR؛ 5 ميكروغرام لكل منها) مع متجه الترانسبوزاز (p2T-CAG-mT2TP؛ 5 ميكروغرام) إلى الخلايا المفككة باستخدام نظام إلكتربوريشن وفقا للبروتوكولات المعتمدة24.
ملاحظة: كميات DNA البلازميد المحددة في الخطوة 2.2 (5 ميكروغرام لكل تركيب) محسنة لحوالي 500–1000 عضوي في كل تفاعل تقلل كهربائي. أثناء التسامية الكهربائية، تحقق من أن الممانعة التي يقاس بواسطة الكهربائي تقع ضمن 25–55 Ω. تشير المقاومة تحت 25 Ω إلى مشاكل في كثافة الخلايا الزائدة أو موصلية المخزن الكهربائي؛ المقاومة فوق 55 Ω تشير إلى نقص عدد الخلايا أو ضعف قدرة البقاء. قم بضبط تركيز الخلية أو استبدال مخزن التقشير الكهربائي إذا انخفض المقاومة خارج هذا النطاق. - بعد التسامية الكهربائية، تم تزويد خلايا الزراعة في وسط مهيأ ب Wnt ب 10 ميكرومولار Y-27632 ديهيدروكلوريد لمدة 3 أيام لدعم استعادة الخلايا وتشكيل العضويات.
- ابدأ اختيار المضادات الحيوية لتركيبات التعبير الزائد (بوروميسين (2 ميكروغرام/مل) لخطوط H2B-iRFP أو بلاستيسيدين (10 ميكروغرام/مل) لخطوط H2B-mChery) بعد أسبوع من الحفر الكهربائي للسماح باسترداد كاف قبل ضغط الاختيار.
- حافظ على الانتقاء المستمر لمدة أسبوعين.
- اختر نسخ عضوية فلورية تحت مجهر ستيريو مزود بالتألق الفوق الفلوري باستخدام مجموعات مرشحات مناسبة.
- قم بفصل النسخ المختارة إلى خلايا منفردة باستخدام كاشف تفكك يشبه التربسين المؤتلف وتوسع في وسط مشروط ب Wnt لمدة أسبوعين قبل الانتقال إلى وسط ENR.
- التحقق من خطوط المراسلين من خلال تأكيد تحديد الموقع النووي الموحد للإشارة الفلورية والتعبير المستقر عبر المقاطع.
- تحقق من أن إدخال المبلغ لا يؤثر على معدل نمو الأعضاء أو الشكل أو القدرة على التمايز من خلال مقارنة خطوط الوالدين غير المعنونة.
- لتمكين قراءات البروتينات الموضعية في الغشاء أو الهيكل الخلوي، يمكنك التعبير المشترك عن مبلغ فلوري محل اهتمام (مثل Myosin-II الموسوم ب mNeonGreen) في نفس خط العضوي مع مخبر H2B النواوي.
ملاحظة: يمكن توسيع خطوط المراسلين العضوية H2B المعتمدة وحفظها بالتبريد. تعمل هذه الخطوط كأساس متعدد الاستخدامات لتجارب الفسيفساء اللاحقة: يمكن إدخال مراسلين إضافيين أو طفرات جينية في نفس الخلفية الموسومة ب H2B، مما يولد مكتبة من الخطوط متوافقة مع سير العمل الفسيفسائي الموضح في القسم 4.
3. توليد العضويات المعوية البشرية التي تناقض المصير الذاتي
- توليد مراسل الفلورية MUC2 في الأعضاء المعوية البشرية باستخدام التكامل المستهدف المستقل عن التجانس (CRISPR-HOT) بوساطة CRISPR كما هو موضح في Artegiani وآخرون.
- توليد تقرير التوصيل الفلوري DEFA5 في الأعضاء المعوية البشرية بواسطة إصلاح موجه بالهومولوجيا (HDR) كما هو موصوف في He وآخرون.
ملاحظة: تنتج CRISPR-HOT (الخطوة 3.1) وHDR (الخطوة 3.2) مراسلين داخليين داخليين. - تحقق من تعبير المبلغين من خلال تأكيد التواجد المشترك لإشارة الفلورسنت مع صبغ الأجسام المضادة ل MUC2 و DEFA5 على التوالي.
- تحقق من أن إدخال المراسل لا يؤثر على نمو العضويات، أو الشكل، أو القدرة على التمايز.
ملاحظة: نهج CRISPR-HOT قابل للتطبيق بشكل واسع خارج علامات المصير ويمكن استخدامه لتوليد مراسلين فلوريين داخليين للبروتينات الموضعية في الغشاء والبروتينات الهيكلية الخلوية مثل الميوسين-II، E-كاديرين، أو ZO-1 في كل من الأعضاء البشرية والفأرية.
4. توليد الأورجانويدات الفسيفسائية
- قبل ثلاثة أيام من توليد الفسيفساء العضوية، قم بتمرير كلا الخطين العضويين إلى وسط مهيأ ب Wnt لتعزيز توسع الخلايا الجذعية وتعظيم بقاء الخلايا أثناء التفكك.
- في يوم توليد الفسيفساء، يتم تغطية كل بئر من صفيحة تحتوي على 48 بئر ب 20 ميكرولتر من 5٪ BME في DMEM لتوفير طبقة لاصقة رقيقة لتثبيت الخلايا. حضانا عند 37 درجة مئوية لمدة ساعة واحدة.
- قم بإذابة الكتلة الحيوية بإضافة وسط قاعدي بارد جدا وجمع الأعضاء العضوية من كل خط بشكل منفصل عن طريق الطرد المركزي عند حرارة 300 × جرام لمدة 5 دقائق عند 4 درجات مئوية. تفكك الأعضاء إلى الخلايا المفردة عن طريق الحضانة في محلول انفصال خلوي إنزيمي لمدة 5–7 دقائق في حمام ماء عند درجة حرارة 37 درجة مئوية. قم بعمل ماصة متكررة على نظام التعليق باستخدام ماصة P1000 للمساعدة في التفكك الميكانيكي. راقب التفكك تحت مجهر الحقل الساطع وأوقف التفاعل بإضافة وسط قاعدي بارد مثلج زائد عندما تكون الخلايا في الغالب منفردة أو شظايا عضوية صغيرة من 2–10 خلايا مرئية.
- الخلايا الحبيبية عن طريق الطرد المركزي عند 300 × جرام لمدة 5 دقائق عند 4 درجات مئوية. اختياري: فلتر كل تعليق خلوي عبر مصفاة خلوية بحجم 40 ميكرومتر لإزالة الكتل المتبقية، والحطام الخلوي، وشظايا جل BME.
ملاحظة: يضمن ذلك تعليق الخلايا نظيفا، ويحسن تجانس الفسيفساء، ويقلل من خطر وجود رقع استنساخية كبيرة تنشأ من تجمعات الخلايا المكونة مسبقا. لخلق حدود أكبر بين مجموعات الخلايا، لا ينصح بالترشيح. - قيم قدرة الخلايا على البقاء وعد الخلايا القابلة للحياة باستخدام استبعاد الأزرق التريباني. اجمع مجموعتي الخلايا عند النسبة المطلوبة (مثلا 1:1، 1:3، أو 1:9) ليصبح مجموعا 300,000 خلية في 500 ميكرولتر من وسط مكيف ب Wnt مع 10 ميكرومولار من ديهيدروكلوريد Y-27632. اخلط جيدا عن طريق العزف اللطيف على الماصات.
ملاحظة: تحدد نسبة الخلط نوع التحليل: حيث تعزل نسبة المراسل إلى غير المعنونة (مثلا 1:9) الخلايا الموسومة الفردية بين الجيران غير الموسومين، مما يتيح نسب غير لبس فيه لإشارات الغشاء والهيكل الخلوي إلى خلايا منفردة. نسبة كبيرة من خلايا الإبلاغ (مثل 9:1) تعكس هذا المنظور، مما يسمح بالتقاط استجابة الجوار حول الخلية غير المعنونة. - زرع تعليق الخلية في صفيحة 48 بئر مطلية. قم بالطرد المركزي على الطبق عند 200 × جرام لمدة 5 دقائق في درجة حرارة الغرفة وحضن الطبق عند 37 درجة مئوية.
- بعد 24 ساعة، يتم فصل طبقة الخلية ميكانيكيا عن طريق الكشط بطرف ماصة P200 والغسل جيدا باستخدام وسط قاعدة بارد جدا أو باستخدام مكشطة خلية. اجمع الركام المنفصل عن طريق الطرد المركزي عند 300 × جرام لمدة 3 دقائق عند 4 درجات مئوية دون الحاجة إلى قص ميكانيكي إضافي. أعد تعليق التجمعات في الطب الحيوي والصفائح إلى حاملات عينات متوافقة مع التصوير. الثقافة في وسيط ENR.
ملاحظة: خطوة التجميع ثنائية الأبعاد بدون الطب الحيوي ضرورية لتوليد عضويات فسيفسائية مختلطة جيدا مع توزيع الملح والفلفل بين مجموعتي الخلية. - بالنسبة للعضويات الفسيفسائية البشرية، استبدل الوسط المكيف ب Wnt وENR بوسط التمدد البشري (الجدول 2)؛ جميع الخطوات الأخرى تبقى دون تغيير.
5. تحضير العينة لتصوير الخلايا الحية الكونفوكية
- استخدم غرف تصوير قاع زجاجي (مثل لوحة قاع زجاجي ذات 24 بئر مع غطاء بوروسيليكات عالي الأداء #1.5) لضمان التوافق البصري مع الأهداف الكونفوكالية ذات الفتحة الرقمية العالية (NA).
- قم بتغليف نظام تعليق الأورغانويد-BME كقبة رفيعة (≤30 ميكرولتر لكل بئر) بالقرب من مركز قاع الزجاج. قبل الانتقال إلى 37 درجة مئوية، حضن الصفيحة عند 4 درجات مئوية لمدة 5–10 دقائق للسماح للعضويات بالغوص نحو قاع الزجاج بالجاذبية قبل تجليف BME.
ملاحظة: هذا يقلل من مسافة العمل بين العضوي والغطاء المنزلق، مما يعزز جودة الصورة باستخدام المجاهر المقلوبة. - انقله إلى 37 درجة مئوية ودع الطب الحيوي يتصلب لمدة 20–30 دقيقة. ثم أضف 500 ميكرولتر من وسط النمو المسخن مسبقا لكل 24 بئر. دع الأعضاء تتعافى وتثبت شكلها لمدة لا تقل عن 24 ساعة بعد الطلاء قبل بدء التصوير الحي.
- لتقليل التبخر أثناء التصوير طويل الأمد، استخدم غرفة حضانة رطبة في أعلى المرحلة. ضع العينة على مرحلة المجهر قبل التصوير 1–2 ساعة للسماح بالتوازن الحراري وتقليل انحراف Z أثناء الاكتساب.
- تأكد من أن حاضنة المرحلة العليا تحافظ على درجة حرارة 37 درجة مئوية و5٪ ثاني أكسيد الكربون طوال فترة التصوير.
- اختر عضويات تقع بالقرب من قاع الزجاج (≤50 ميكرومتر من الغطاء الداخلي) ذات شكل صحي: بنية شفافة لبراعم القبو لعضويات الفئران أو البنية الكيسية/البرعمية للعضويات البشرية. تجنب الأعضاء الموضوعة عميقا في العمارة الحيوية الحيوية، حيث تتدهور جودة الإشارة ودقة التتبع بشكل كبير مع عمق التصوير.
ملاحظة: وجود الفينول الأحمر في كل من الطب الحيوي ووسط الزراعة لا يسبب تشوهات كبيرة في التألق الذاتي أو التصوير، حيث أن المراسلين الفلوريين المستخدمين في هذا البروتوكول (H2B-mCherry، H2B-iRFP، MUC2-mNeonGreen، وDEFA5-dsRed) ينتجون نسبة إشارة إلى ضوضاء كافية للكشف النووي الموثوق وتتبع الخلايا الفردية. ومع ذلك، بالنسبة للتجارب التي تستخدم مراسلين أضعف أو قنوات فلورية إضافية، قد يكون التحول إلى الطب الحيوي الخالي من الفينول الأحمر ووسط الزراعة مفيدا.
6. اكتساب الصورة الكونفوكية
- استخدم مجهر كونفوكال بالمسح بالليزر مزود بحاضنة على سطح المرحلة (37 درجة مئوية، 5٪ ثاني أكسيد الكربون)، ومحرك Z محرك، وخطوط ليزر مناسبة للفلوروفورات المستخدمة.
- اختر الهدف بناء على متطلبات التجربة. استخدم هدف الغمر في الماء بقياس 40×/1.10 NA مع مسافة عمل 0.62 مم للتصوير أعمق داخل ال BME. استخدم هدف جوي 20×/0.75 NA بمسافة عمل 0.62 مم لالتقاط الطائرات متعددة الأعضاء أو من مجال رؤية كبير.
ملاحظة: يحسن الحمض النووي الأعلى من جمع الضوء، الدقة، والتقسيم البصري، ولهذا السبب يقوم هدف الغمر بالماء بنسبة 40×/1.10 بحل التفاصيل الدقيقة بشكل أعمق داخل الميكروفون، بينما التكبير الأعلى يقيد المجال إلى واحد أو عدد قليل من الأورجينيات. يجمع هدف الهواء 20×/0.75 ضوءا أقل وأقسام أقل إحكاما، لكن مجاله الأوسع يلتقط العديد من العضويات في عملية الاقتناء الواحدة، مما يجعله الخيار الأفضل للتصوير على مقياس السكان أو التصوير متعدد المواضيع. - اترك العينة ووسط الغمر يتوازنان حراريا على مرحلة المجهر لمدة لا تقل عن ساعة إلى ساعتين قبل البدء في الاقتناء (الخطوة 5.8).
- تحقق من التركيز في جميع المواقع خلال النقاط الزمنية الأولى وصحح يدويا أي مواقع تظهر انحراف قبل أن يتراكم.
ملاحظة: فقدان التركيز وانحرافات الصورة من التحديات الشائعة أثناء اكتساب الكونفوكال طويل الأمد ويجب إدارتها بنشاط. لأغراض الغمر في الماء، استخدم زيت غمر بمعامل انكسار مطابق للماء (n = 1.333) بدلا من الماء نفسه، مما يلغي التبخر مع الحفاظ على الخصائص البصرية للغمر في الماء. - قم بضبط إعدادات الإثارة والانبعاث لكل فلوروفور. لتقليل النزيف المتقاطع، احصل على قنوات الفلورة بشكل متسلسل بدلا من الوقت نفسه، مما يضمن أن خط ليزر واحد فقط نشط في كل مرة. استخدم المسح التسلسلي ثنائي الاتجاه لتقليل إجمالي وقت الاكتساب لكل نقطة زمنية مع الحفاظ على فصل القنوات.
ملاحظة: تضمين عضويات تحكم بلون واحد تعبر عن مراسل واحد فقط لقياس النزيف المتقاطع المتبقي وتطبيق تصحيحات فك الخلط الطيفي إذا لزم الأمر. - بالنسبة للعضويات الفسيفساء ذات اللونين، استخدم إثارة 561 نانومتر ل H2B-mCherry و638 نانومتر ل H2B-iRFP670 مع مرشحات انبعاث مناسبة لتقليل التسرب الطيفي. بالنسبة للعضويات المعوية البشرية، استخدم إثارة 488 نانومتر ل MUC2-mNeonGreen و561 نانومتر ل DEFA5-dsRed.
ملاحظة: يمكن أن تحل الأصباغ النووية الحية مثل Hoechst 33342 أو صبغة DNA فلورية حمراء بعيدة محل علامة نووية جينية، حيث يعمل خط الكشف على إشارة نووية بدلا من فلوروفور محدد. لاحظ أن أصباغ الارتباط بالحمض النووي يمكن أن تصبح سامة ضوئية ومضادة للتكاثر تحت الإضاءة المتكررة، خصوصا هوشت، الذي له إثارة ~400 نانومتر، لذا حافظ على تركيزات منخفضة وفضل الصبغات الحمراء البعيدة منخفضة السمية للتصوير الحي الممتد. - اضبط مكدس Z على شكل 25–35 مقطع بصري بفواصل 2 ميكرومتر. حدد الفترة الزمنية لتكون 5–10 دقائق للعضويات المعوية في الفأر و15–30 دقيقة للعضويات البشرية.
ملاحظة: للكشف النووي الموثوق باستخدام OrganoidTracker، نوصي بالإعدادات التالية كنقطة بداية: هدف الماء 40x، سرعة مسح 600 هرتز، عامل التكبير 0.75×، مما ينتج حجم بكسل 0.38 ميكرومتر في XY. توفر هذه الإعدادات عينة مكانية كافية لتحليل النوى الفردية مع الحفاظ على وقت الاكتساب لكل مجموعة z-stack ضمن الحدود المقبولة للتصوير طويل الأمد متعدد المواضيع. - حافظ على طاقة الليزر منخفضة قدر الإمكان، لكن زد حتى تتضح وضوح النوى. ابدأ عملية الاستحواذ على التايم لابس متعدد المواضيع. تأكد من أن إجمالي وقت الاستحواذ لكل نقطة زمنية عبر جميع المراكز لا يتجاوز 90٪ من الفترة الزمنية المحددة لاستيعاب حركة المرحلة وتعديلات التركيز التلقائي. الصورة لمدة 12–72 ساعة، حسب الأسئلة البيولوجية.
ملاحظة: قبل بدء تشغيل طويل على OrganoidTracker، احصل على مكدس z واحد واختبر التعريف. التعرف الموثوق مع قلة الاكتشافات الخاطئة أو الخاطئة يؤكد أن الإعدادات كافية. وإلا، قم بضبط قوة الليزر، أو كسب الكاشف، أو خطوة Z قبل المتابعة. عادة ما يتطلب التقاط أحداث التمايز مثل ظهور خلايا الكأس الموجبة ل MUC2 أو خلايا بانيث إيجابية ل DEFA5 من 48 إلى 72 ساعة. يمكن التقاط الديناميكيات قصيرة المدى مثل بروز الخلايا خلال 12–24 ساعة. السمية الضوئية هي العامل المحدد الأساسي للتصوير طويل الأمد. تشمل العلامات تباطؤ انقسام الخلية، الاستماتة المبرمجة، تكاثف النوى، وانهيار العضويات (الشكل 2). يوصى بإدراج الأعضاء الضابطة غير المصورة كمرجع داخلي. إذا تمت ملاحظة ذلك، قلل من قوة الليزر أو زد الفترة الزمنية.
7. تتبع الخلية الواحدة وإعادة بناء السلالة باستخدام أداة تتبع الخلايا العضوية شبه آلية مثل OrganoidTracker
- قم بتثبيت OrganoidTracker باتباع التعليمات في https://github.com/jvzonlab/OrganoidTracker.
ملاحظة: يتطلب البرنامج Python 3.8 أو أحدث مع numpy وscipy وmatplotlib وtensorflow. - قم بتحميل مجموعة بيانات الزمن في OrganoidTracker. تشمل تنسيقات الملفات المقبولة مكدس TIFF، ND2، وLIF. شغل الكشف القائم على الشبكة العصبية للنواة على القناة النووية (H2B-mCherry أو H2B-iRFP للعضويات الفأرية).
ملاحظة: النموذج المدرب مسبقا المرفق مع البرنامج محسن لنوى الأمعاء العضوية الموسومة ب H2B ولا يمكن تطبيقه مباشرة لتحديد الخلايا الموجبة MUC2-mNeonGreen أو DEFA5-dsRed تلقائيا. - راجع وتصحيح الاكتشافات الآلية يدويا، مع التركيز على الإيجابيات الكاذبة (الاكتشافات على الحطام، المواد الفلورية الذاتية، أو الأشكال الانقسامية المزدوجة)، السلبيات الكاذبة (النوى المفقودة في المناطق الكثيفة أو على أطراف العضويات)، ومفاتيح الهوية (تعيينات هوية خلوية خاطئة عند مرور خليتين بالقرب منها).
- شغل خوارزمية الربط لربط الاكتشافات عبر نقاط زمنية وإعادة بناء مسارات الخلية. راجع الروابط يدويا، مع الانتباه بشكل خاص لأحداث انقسام الخلية (مسار واحد ينقسم إلى مسارين ابنتين) وأحداث بروز الخلية (نهاية المسار عند خروج الخلية من الظهارة).
ملاحظة: بالنسبة للعضويات الفسيفسائية، قم بإجراء الكشف والتتبع على القناة النووية الأساسية، ثم صنف كل خلية متتبعة على أنها تنتمي إلى مجموعة A أو B بناء على نسبة شدة الفلورة بين القناتين النوويتين. - استخدم خيار "التتبع اليدوي" في البرنامج لتتبع الأعضاء المصيرية البشرية. قم بقياس فلورة المراسل عن طريق قياس متوسط شدة الإشارة ضمن عائد عائد محدد حول موقع مركز الخلية الذي يتم إدخاله أثناء التتبع اليدوي. النقطة الزمنية التي يتجاوز فيها شدة المراسلين عتبة محددة تمثل الالتزام بالقدر. بداية إشارة MUC2-mNeonGreen تحدد التزام خلايا الكأس، بينما بداية إشارة DEFA5-dsRed تحدد التزام خلايا بانيث.
- احفظ مشروع التتبع بانتظام باستخدام وظيفة الحفظ التدريجي للبرنامج، والتي تسمح بإيقاف عملية التصحيح واستئنافها. تصدير بيانات تتبع البيانات (بما في ذلك مواقع الخلايا، أشجار السلالة، وتصنيفات الخلايا) للتحليل اللاحق بلغة بايثون أو R.
8. قياس انتقالات مصير الخلية وسلوك الخلية الواحدة
- لقياس انتقالات نوع الخلية، حدد النقطة الزمنية التي تصبح فيها كل خلية سالبة من DEFA5-dsRed موجبة DEFA5-dsRed (التزام خلية بانيث) بناء على شدة قناة المراسل في التتبع. لكل خلية متتبعة، استخرج شدة الفلورة لكل من قناتي MUC2-mNeonGreen وDEFA5-dsRed مع مرور الوقت لمراقبة العلاقة الزمنية بين المراسلين. رسم مسارات شدة القناة المزدوجة للخلايا الفردية لتحديد ديناميكيات المراسلين المترابطة.
ملاحظة: مراقبة القناتين في نفس الوقت في الخلايا المتتبعة بشكل فردي أمر ضروري للتمييز بين التزام خلايا الكأس (تنشيط MUC2-mNeonGreen المستمر) والتزام خلايا Paneth (تنشيط MUC2-mNeonGreen العابر يليه بداية DEFA5-dsRed). التحليل أحادي القناة وحده غير كاف لالتقاط هذه الديناميكية وقد يؤدي إلى تصنيف خاطئ لسلف خلايا بانيث المبكرة كخلايا كأس. - في الأعضاء الفسيفسائية، استخرج مقاييس سلوكية لكل خلية لكل خلية متتبعة، بما في ذلك عمر الخلية (الفترة من آخر انقسام إلى نهاية التصوير)، ومعدل الانقسام، وسرعة الهجرة. عندما يكون هناك مراسل مشترك يعبر عنه محل اهتمام، قم بقياس شدة الفلورة مع مرور الوقت لالتقاط التغيرات الديناميكية خلال أحداث محددة مثل الانقسام، الهجرة، أو البثق. ربط هذه القياسات بسياق الجوار المحلي للخلية من خلال مقارنة سلوك الخلية الموسومة بجيرانها المباشرين غير الموسومين.
ملاحظة: عندما يتم خلط نمطين جينيين في نفس العضو، يمكن أن تشير الفروقات المنهجية في أي من هذه المقاييس بين المجموعتين إلى ميزة لياقة تنافسية لأحد الأنماط الجينية على الآخر. - قم بإجراء التحليل الإحصائي باستخدام الاختبارات المناسبة. لمقارنة توقيت الالتزام المصيري أو مقاييس كل خلية مثل العمر، سرعة الهجرة، ومعدل الانقسام بين مجموعتين، استخدم اختبار مان-ويتني U. لمقارنة ديناميكيات شدة المراسلين عبر الزمن، استخدم نموذج التأثيرات المختلطة الخطية لأخذ القياسات المتكررة داخل نفس الخلية في الاعتبار.
ملاحظة: يجب إجراء جميع القياسات على بيانات تتبع مصححة يدويا. مجموعات البيانات غير المصححة أو المصححة جزئيا تدخل أخطاء منهجية في توقيت الالتزام بالقدر، والتخصيصات المكانية، وحسابات المقاييس السلوكية. خصص وقتا كافيا للتصحيح اليدوي قبل الانتقال إلى القياس (انظر القسم 7).
النتائج
وفقا للبروتوكول الموضح في القسم 4، تتكون مجموعات الخلايا الموسومة ب H2B-mCherry وH2B-iRFP على مجموعات الخلايا الموسومة ب H2B-mCherry وH2B-iRFP خلال 48 ساعة من البذر. يتميز التكوين الفسيفسائي الناجح إما بتوزيع الملح والفلفل أو بتحديد حدود بين المجموعتين، وذلك حسب درجة التفكك المستخدم. يشير توزيع الملح والفلفل إلى اختلاط عشوائي وخلوي واحد بين المجموعتين، حيث تتداخل خلايا كل مجموعة على مستوى الخلية الواحدة، دون وجود مجالات استنساخ كبيرة. أما الحدود المحددة، فعلى النقيض من ذلك، تؤدي إلى وجود بقع متماسكة لكل مجموعة خلوية ضمن نفس العضوية العضوية. درجة تشتت الخلايا تتحكم بها مدة خطوة التفكك وقوة التوصيل بالماصات: التفكك الشامل لخلية واحدة ينتج فسيفساء ملح وفلفل، بينما يحافظ التجزئة اللطيفة على تجمعات مستنسخة صغيرة (الشكل 3A).
يتيح وضع العلامات الفسيفسائية التحليل الخلوي الواحد للعمليات التي لا يمكن حلها في الأنسجة ذات العلامات المتساوية. عندما تحيط خلية فردية تشارك في التعبير عن مراسل محل اهتمام (مثل مراسل فلوري ميوسين-II) بجيران غير معنونين، يمكن نسب ديناميكيات هيكلها الخلوي أثناء الهجرة أو الانقسام أو البروز بشكل لا لبس فيه إلى تلك الخلية (الشكل 3B). يسهل مراسلو H2B النووي تحديد كوكبات الخلايا المعلوماتية داخل الفسيفساء، ويمكن استخراج قياسات لكل خلية مثل عمر العمر، ومعدل الانقسام، وديناميكيات شدة المراسلين من بيانات التتبع (الشكل 3C). عندما يتم خلط نمطين جينيين، يمكن مقارنة هذه المقاييس لكل خلية عبر السكان لتقييم فروق اللياقة التنافسية.
في الأعضاء المعوية البشرية الحاملة لمراسلي مصير MUC2-mNeonGreen وDEFA5-dsRed، يظهر التزام مصير الخلايا الإفرازية كزيادة تدريجية في تألق المراسل على مدى أيام. تم نقل العضويات التي زرعت في وسط النضج إلى ألواح ذات قاع زجاجي في اليوم السابع وتم تصويرها بواسطة مجهر الخلايا الحية الكونفوكالي (الشكل 4A). يكشف تصوير الزمن الفاصل عن ديناميكيتين مميزتين للتقرير: خلايا الكأس تنشط وتحافظ على تعبير MUC2-mNeonGreen العالي طوال فترة التصوير، بينما تظهر خلايا Paneth تنشيط أولي ل MUC2-mNeonGreen يتبعه انخفاض تدريجي في الإشارة ثم تنشيط DEFA5-dsRed6 (الشكل 4A). يؤكد قياس خلية واحدة هذا الانتقال المتسلسل على مستوى الخلايا الفردية (الشكل 4B)، مما يشير إلى أن التزام خلية بانيث يمر عبر حالة وسيطة عابرة تعبر عن MUC2 بدلا من مباشرة من سلف غير معنون. تؤكد منحنيات الشدة المتوسطة عبر عدة خلايا متتبعة أن هذا النمط متسق على مستوى السكان، حيث تظهر مقدمات خلايا بانيث علاقة عكسية مميزة بين إشارات MUC2-mNeonGreen وإشارات DEFA5-dsRed (الشكل 4C). تظهر هذه البيانات معا أن نظام الإبلاغ المزدوج يحل مسارات مصير إفرازية مميزة بدقة خلية واحدة.
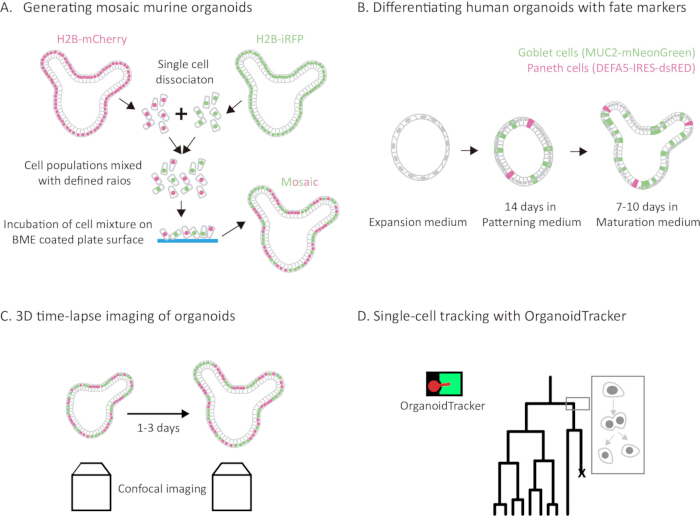
الشكل 1: سير العمل الذي يدمج التصوير الحي للخلايا الكونفوكالي وتتبع الخلايا الأحادية مع استراتيجيتين مكملتين للتقرير في الأعضاء العضوية المعوية البشرية والفأرية. (أ) نظرة مخططية على سير عمل توليد العضوية الفسيفسائية. يتم تفكك عضويات الأمعاء في الفأر التي تعبر عن H2B-mCherry (الأرجواني) أو H2B-iRFP (الأخضر) إلى خلايا فردية، وتخلط بنسب محددة، وتزرع على صفيحة مغطاة ب BME لتكوين مجموع لمدة 24 ساعة قبل إعادة دمجه في BME. (ب) نظرة مخططية على تمايز الأعضاء المعوية البشرية. يتم تمييز العضويات البشرية التي تعبر عن MUC2-mNeonGreen (خلايا الكأس، خضراء) وDEFA5-dsRed (خلايا بانيث، أرجواني) المراسلات الداخلية الداخلية باستخدام بروتوكول من خطوتين. تزرع العضويات أولا في وسط النمط لمدة 14 يوما، تليها وسط النضج لمدة 7–10 أيام. خلال التمايز، تنتقل الأعضاء من شكل كيسي كروي إلى بنية متبرعمة على نطاق واسع تضم أنواعا رئيسية من خلايا الأمعاء، بما في ذلك خلايا الكأس الإيجابية MUC2-mNeonGreen وخلايا بانيث DEFA5-ds-Red-إيجابية. (ج) تصوير كونفوكالي ثلاثي الأبعاد بتقنية التايم لابس لعضوي فسيفساء في الأمعاء الفأر يعبر عن مراسلين نوويين. (د) تتبع الخلية الواحدة وإعادة بناء السلالة باستخدام أداة برمجية شبه آلية لتتبع الخلايا العضوية. ترتبط النوى المكتشفة عبر نقاط زمنية لإعادة بناء مسارات الخلايا وأشجار السلالة، مما يمكن من قياس انقسام الخلية والهجرة وأحداث البثق. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
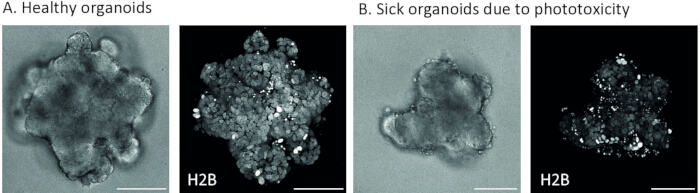
الشكل 2: مقارنة بين عضويات الأمعاء البشرية الصحية والسامة ضوئيا أثناء التصوير الكونفوكلي الحي. (أ) صور ممثلة للحقول المضيئة والفلورية لعضوي أمعاء بشري سليم. تظهر العضويات السليمة شكل كيسي أو متفتح واضحا دون وجود حطام خلوي في الوسط المحيط. (ب) صور تمثيلية للحقول الساطعة والفلورية لعضوي معوي بشري تظهر ضررا ضوئيا ساما. تشمل علامات السمية الضوئية تراكم حطام الخلايا في الوسط المحيط، والتكثف النووي، وتوقف انقسام الخلية. تعرض صور الفلورة H2B-mCherry كإسقاطات شدة قصوى. أشرطة المقياس، 100 ميكرومتر. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
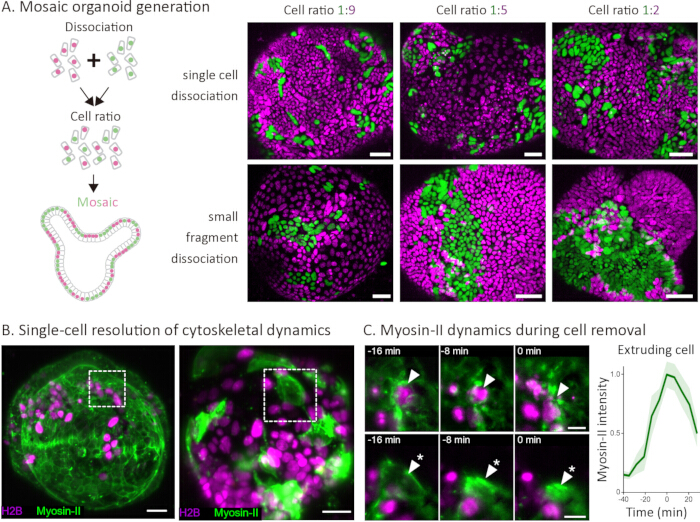
الشكل 3: توليد العضويات الفسيفسائية وحل ديناميكيات الهيكل الخلوي في عضويات أمعاء الفأر .(أ) مخطط لتوليد الفسيفساء العضوية عن طريق التفكك، والخلط عند نسب محددة، وإعادة التجميع. صور كونفوكالية تمثيلية للعضويات الفسيفسائية المتولدة بنسب خلوية 1:9، 1:5، و1:2 (H2B-mCherry، أخضر؛ H2B-iRFP، مجنتا) باستخدام تفكك الخلية المفردة (الصف العلوي) أو تفكك الشظايا الصغيرة (الصف السفلي). ينتج التفكك في خلية واحدة نمط خلط ملح وفلفل، بينما يؤدي التفكك الصغير إلى وجود بقع مستنسخة أكبر. أشرطة مقياس، 50 ميكرومتر. (B) صور كونفوكال للعضويات الفسيفسائية حيث يعبر مجتمع كثيف (يسار) أو متفرق (يمين) عن ميوسين-II-mNeonGreen (أخضر)، بينما يعبر السكان الآخر فقط عن H2B-iRFP (الأرجواني). تشير الصناديق المتقطعة إلى المناطق المكبرة بحرف (C). أشرطة مقياس، 20 ميكرومتر. (C) سلسلة تايم لابس تظهر بروز الخلية بفواصل زمنية 8 دقائق، محاذية للحظة إزالة الخلية (t = 0 دقيقة). الصف العلوي (رؤوس الأسهم): بروز خلية غير معنونة محاطة بجيران يعبر عن Myosin-II-mNeonGreen، كاشفا عن استجابة الحي. الصف السفلي (نجوم): بروز خلية فردية تعبر عن الميوسين-II-mNeonGreen محاطة بجيران غير معنونين، مما يتيح نسبا واضحا لديناميكيات الميوسين القشري إلى الخلية الخارجة. قضبان القياس، 10 ميكرومتر. يمين: شدة فلورية ميوسين-II-mNeonGreen مطبعة مع مرور الوقت للخلايا الخارجية، محاذية للحظة إزالة الخلية (t = 0 دقيقة). يتراكم الميوسين-II تدريجيا في الدقائق التي تسبق البثق، ويبلغ ذروته عند الإزالة. تشير المنطقة المظللة إلى الانحراف المعياري. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
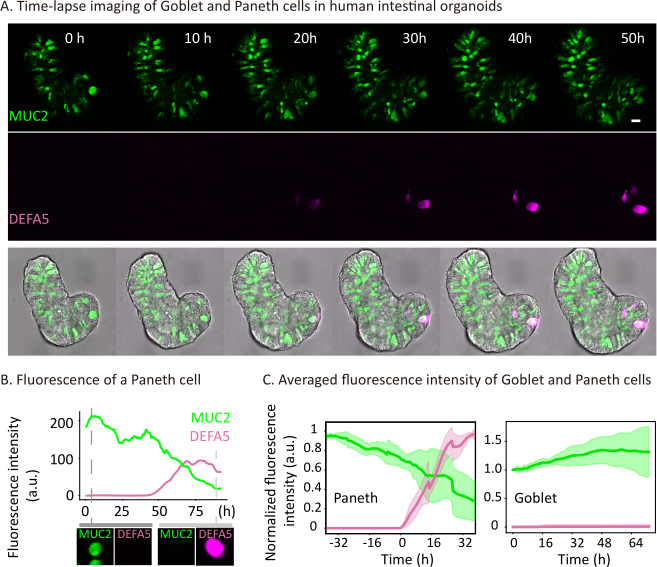
الشكل 4: مراقبة فورية لانتقالات مصير الخلايا الإفرازية في الأعضاء المعوية البشرية باستخدام مراسلي مصير MUC2-mNeonGreen وDEFA5-dsRed. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
(أ) صور كونفوكية تايم لابس تمثيلية لعضو معوي بشري تم زراعته في وسط النضج وتم تصويره من اليوم السابع للنضج. MUC2-mNeonGreen (الأخضر) يرمز إلى خلايا الكأس، وDEFA5-dsRed (الأرجواني) يرمز إلى خلايا Paneth. شريط المقياس، 20 ميكرومتر. (B) قياس كثافة الفلورة في خلية واحدة لأشعة MUC2-mNeonGreen (خضراء) وDEFA5-dsRed (ماجنتا) مع مرور الوقت لخلية بانيث تمثيلية، يظهر تفعيل أولي ل MUC2-mNeonGreen يتبعه انخفاض تدريجي في الإشارة وبداية لاحقة لظهور DEFA5-dsRed. تظهر شدة الفلورة بوحدات عشوائية (a.u.). (ج) منحنيات شدة الفلورة المتوسطة لخلايا الكأس (n = 7 خلايا) وسلف خلايا بانيث (n = 8 خلايا) تظهر ديناميكيات إشارات MUC2-mNeonGreen (خضراء) وDEFA5-dsRed (ماجنتا) على مدى الزمن6. بالنسبة لسلف خلايا بانيث، يتماشى الوقت مع الظهور الأول لإشارة DEFA5-dsRed (t = 0 ساعة). تحافظ خلايا الكأس على كثافة MUC2-mNeonGreen عالية باستمرار مع مرور الوقت، بينما تظهر خلايا بانيث السابقة علاقة عكسية مميزة بين إشارات MUC2-mNeonGreen وإشارات DEFA5-dsRed. تشير المناطق المظللة إلى الانحراف المعياري.
| المكون | تركيز المخزون | التركيز النهائي |
| طائرة دولبيكو المعدلة إيغل ميديوم/F12 (متقدمة DMEM/F12) | الوسط الأساسي | |
| هيبس | 1M | 10 مللي متر |
| غلوتامكس | 200 مللي متر | 2 مللي موتر |
| ملحق N2 | 100x | 1x |
| مكمل فيتامين B27 | 50x | 1x |
| ن-أستيل سيستين | 500 مللي متر | 1 مللي مولار |
| البنسلين/الستربتوميسين | 10000U/ml، 10000ug/ml | 100U/ml، 100ug/ml |
| الفئران المؤتلفة EGF | 50ng/ml | |
| الفأر المؤتلاف نوجين | 100 نانوغرام/مل | |
| R-spondin البشري المؤتلف 1 | 500 نانوغرام/مل |
الجدول 1: وسط نمو العضوية المعوية في الفئران.
| المكون | تركيز المخزون | التركيز النهائي |
| طائرة دولبيكو المعدلة إيغل ميديوم/F12 (متقدمة DMEM/F12) | الوسط الأساسي | |
| هيبس | 1M | 10 مللي متر |
| غلوتامكس | 200 مللي متر | 2 مللي موتر |
| مكمل فيتامين B27 | 50x | 1x |
| البنسلين/الستربتوميسين | 10000U/ml، 10000ug/ml | 100U/ml، 100ug/ml |
| بريموسين | 50 ملغ/مل | 100 ميكروغرام/مل |
| وسط مهيأ ب R-سبوندين (U-Protein Express) | 2% | |
| وسط مكيف نوجين (يو-بروتين إكسبريس) | 2% | |
| ن-أستيل سيستين | 500 مللي متر | 1 مللي مولار |
| نيكوتيناميد | 1M | 10 مللي متر |
| EGF المؤتلف البشري | 500 ميكروغرام/مل | 50ng/ml |
| A83-01 | 5 مللي مو | 500 نانومتر |
| SB202190 (مثبط الصفحة 38) | 30 مللي متر | 3uM |
| بروستاجلاندين E2 | 10 مللي متر | 1uM |
| الحاملة البديلة | 1000x |
الجدول 2: وسط التمدد للعضويات المعوية البشرية.
| المكون | تركيز المخزون | التركيز النهائي |
| طائرة دولبيكو المعدلة إيغل ميديوم/F12 (متقدمة DMEM/F12) | الوسط الأساسي | |
| هيبس | 1M | 10 مللي متر |
| غلوتامكس | 200 مللي متر | 2 مللي موتر |
| مكمل فيتامين B27 | 50x | 1x |
| البنسلين/الستربتوميسين | 10000U/ml، 10000ug/ml | 100U/ml، 100ug/ml |
| بريموسين | 50 ملغ/مل | 100 ميكروغرام/مل |
| وسط مهيأ ب R-سبوندين (U-Protein Express) | 2% | |
| وسط مكيف نوجين (يو-بروتين إكسبريس) | 2% | |
| ن-أستيل سيستين | 500 مللي متر | 1 مللي مولار |
| EGF المؤتلف البشري | 500 ميكروغرام/مل | 50ng/ml |
| A83-01 | 5 مللي مو | 500 نانومتر |
| الحاملة البديلة | 1000x | |
| CHIR99021 | 3 مللي موتر | 3uM |
| الإنسان المؤتلف IL-22 | 10 ميكروغرام/مل | 2ng/ml |
الجدول 3: وسط النمط للعضويات المعوية البشرية.
| المكون | تركيز المخزون | التركيز النهائي |
| طائرة دولبيكو المعدلة إيغل ميديوم/F12 (متقدمة DMEM/F12) | الوسط الأساسي | |
| هيبس | 1M | 10 مللي متر |
| غلوتامكس | 200 مللي متر | 2 مللي موتر |
| مكمل فيتامين B27 | 50x | 1x |
| البنسلين/الستربتوميسين | 10000U/ml، 10000U/ml | 100U/ml، 100U/ml |
| بريموسين | 50 ملغ/مل | 100 ميكروغرام/مل |
| وسط مهيأ ب R-سبوندين (U-Protein Express) | 2% | |
| وسط مكيف نوجين (يو-بروتين إكسبريس) | 2% | |
| ن-أستيل سيستين | 500 مللي متر | 1 مللي مولار |
| EGF المؤتلف البشري | 500 ميكروغرام/مل | 50ng/ml |
| A83-01 | 5 مللي مو | 500 نانومتر |
| الحاملة البديلة | 30000x | |
| الإنسان المؤتلف IL-22 | 10 ميكروغرام/مل | 2ng/ml |
الجدول 4: وسط النضج للعضويات المعوية البشرية.
المناقشة
يوفر هذا البروتوكول سير عمل خطوة بخطوة لتصوير الخلايا الكونفوكية الحية وتتبع الخلايا المفردة في الأمعاء البشرية والفئران، مبني حول نظامين تجريبيين متكاملين: عضويات الفسيفساء التي تحل سلوك الخلايا الفردية داخل ظهارة كثيفة، وعضويات تقرير المصير التي تعبر عن MUC2-mNeonGreen وDEFA5-dsRed لمراقبة انتقالات أنواع الخلايا الإفرازية في الوقت الحقيقي.
مقارنة بطرق النقاط الزمنية الثابتة مثل التألق المناعي أو تسلسل الحمض النووي الريبي أحادي الخلية، يلتقط التصوير الحي ديناميكيات الانتقالات بدلا من اللقطات. مقارنة بتتبع النسب القائم على Cre، يوفر الحل الزمني لتحديد قرارات المصير الفردية. يضيف نهج الفسيفساء مقارنات داخلية محكومة ضمن نفس السياق النسجي، متجنبا الخلط بين التغيرات بين الأعضاء والعضوية.
تعد عدة خطوات في البروتوكول ضرورية للنجاح. بالنسبة لفسيفساء ذات توزيع الملح والفلفل، يجب أن يكون تفكك الأعضاء إلى خلايا منفردة شاملا لكنه لطيف: فالتفكك غير الكامل ينتج بقع نسيلة كبيرة، بينما يقلل التفكك المفرط من قابلية البقاء (القسم 4.3). خطوة التجميع لمدة 24 ساعة على سطح مستو قبل إعادة الدمج في BME ضرورية للخلط الصحيح بين المجموعتين؛ وحذف ذلك يؤدي إلى فسيفساء ضعيفة التكامل (القسم 4.6–4.8). تتطلب إدارة السمية الضوئية أثناء التصوير معايرة دقيقة، بدءا من إعدادات ليزر محافظة وزيادة فقط إذا أنتج برنامج التتبع سلبيات زائفة مفرطة (القسم 6.8).
القيود الرئيسية تتعلق بالقيود الكامنة في الأنظمة العضوية والتصوير الحي. تفتقر الأعضاء إلى المكونات الستروللية والأوعية الدموية والمناعة التي قد تؤثر على سلوك الخلايا في الجسم الحي. بالنسبة للمجهر الكونفوكلي، يقتصر عمق التصوير على حوالي 100 ميكرومتر من الانزلاق الداخلي، وما بعده يؤدي تشتت الضوء إلى تدهور جودة الإشارة ودقة التتبع. يمكن للميكروسكوب متعدد الفوتونات والميكروسكوب الخفيف أن يوسع هذا النطاق العميق بشكل كبير على حساب أجهزة إضافية وتكييف البروتوكولات. نهج التتبع شبه الآلي، رغم أنه أكثر كفاءة بكثير من التعليق اليدوي، إلا أنه لا يزال يتطلب وقتا كبيرا للتصحيح، خاصة في الأنسجة الكثيفة (القسم 7.4).
كلتا الاستراتيجيتين قابلتان للتوسع بسهولة. من خلال تغيير المقال المعبر عنه مع العلامة النووية، يمكن فحص جوانب مختلفة من سلوك الخلية الواحدة، من الميوسين-II القشري للديناميكيات الميكانيكية إلى E-كاديرين التقاطعي لإعادة تشكيل الالتصاق، وحساسات الكالسيوم الحيوية مثل tq-Ca-FLITS وColBD-Twitch، أو المستشعرات الحيوية الأيضية مثل SoNar لحالة الأكسدة الخلوية NAD+/NADH، مما يتيح قراءة متزامنة لهوية الخلية والنسب والحالة الفسيولوجية داخل نفس العضوية9. 25، 26، 27. تعديل نسبة الخلط يضبط التحليل: الخلايا الموسومة بمقدار متفرق تتيح نسب إشارات الغشاء إلى خلية واحدة، بينما تكشف الخلايا غير الموسومة المتفرقة عن استجابات الجوار. استراتيجية تقرير المصير قابلة للتوسع لتشمل أي موقع داخلي يمكن استخدامه لوضع علامات CRISPR-HOT أو HDR. دمج كلا النهجين داخل نفس العضوي سيسمح بتتبع التزام السلالة وديناميكيات الخلية الواحدة في نفس الوقت.
بشكل أوسع، ينطبق خط التصوير والتحليل على الأعضاء المشتقة من أنسجة ظهارية أخرى، بما في ذلك نماذج المعدة والقولون والكبد والبنكرياس. تعد العضوية المشتقة من الخلايا الجذعية متعددة القدرات المستحثة (iPSC) امتدادا واعدا، حيث أن الوسم النووي المعتمد على H2B وتوليد الفسيفساء عن طريق خلط الخلايا قابل للنقل مباشرة، وقد يمكن هذا المسار من دراسات خاصة بالمصير الخلوي والديناميكيات التنافسية. نماذج الأجنة الاصطناعية مثل الجاسترولويدات والأجنة المشتقة من الخلايا الجذعية قابلة أيضا للتتبع الخلوي الواحد، رغم أن هندستها الأكثر تعقيدا وكثافتها النووية الأعلى قد تتطلب إعادة تدريب نموذج شبكة عصبية لأداة تتبع الخلايا العضوية شبه الآلية وتكييف معلمات التصوير. تشكل عضويات الدماغ تحديات إضافية بسبب حجمها الكبير وكثافتها البصرية، مما يحد من عمق التصوير الكونفوكلي. علاوة على ذلك، تتطلب عضويات الدماغ أسابيع إلى شهور من التمايز قبل إجراء تجارب تصوير ذات معنى، مما يزيد بشكل كبير من جداول التجارب مقارنة بالأعضاء الأمعاء. تعتمد بعض بروتوكولات العضوية الدماغية أيضا على ثقافة التعليق بدلا من تضمين العينات الحيوية، وهو ما لا يتوافق مع طريقة تحضير العينة الموصوفة هنا وستتطلب التكيف مع صيغ المدمجة في المصفوفة أو التركيب السطحي قبل التصوير. المجهر المصنوع من صفائح الضوء، الذي يوفر سمية ضوئية أقل وعمقا تصويريا أكبر، قد يكون أكثر ملاءمة لهذه الأنظمة13. معا، تبرز هذه الامتدادات الإمكانات الواسعة لخط الأنابيب عبر أنظمة نماذج ثلاثية الأبعاد متنوعة تتجاوز الأعضاء الطلائية الموضحة هنا.
الإفصاحات
ه. س. مخترع في براءات اختراع تتعلق بتقنية العضويات. جميع المؤلفين الآخرين يعلنون عدم وجود مصالح متنافسة.
شكر وتقدير
يتم تمويل هذا البحث من قبل وزارة التعليم والثقافة والعلوم في حكومة هولندا من خلال مشروع الجاذبية التابع ل NWO "تجديد المواد المدفوعة" (024.003.013 ZWK MDR) ومن قبل المجلس الأوروبي للأبحاث من خلال منحة ERC Advanced GuTHormones (رقم 101020405)
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | with climate control for temperature and CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | far-red live-cell nuclear dye | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | far-red live-cell DNA dye | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | |
| Wnt3A conditioned medium | homemade | The production of Wnt3A conditioned medium can be found here: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً