يصف هذا البروتوكول التسجيل الفيزيولوجي الكهربائي خارج الخلوي لإشارات منظم ضربات السباحة المستثارة بصرياً من الـ rhopalium المعزول لقنديل البحر الصندوقي Tripedalia cystophora، مما يوفر قراءة كمية لسلوك تجنب العوائق من أجل الاستقصاء الدقيق لمعالجة المعلومات البصرية والتكامل الحسي الحركي.
مقالة منهجية
تسجيل الفيزيولوجيا الكهربائية خارج الخلوية لإشارات منظم ضربات السباحة المستحثة بصرياً من الروباليوم المعزول لـ Tripedalia cystophora
في هذه المقالة
ملخص
الملخص
تجمع قنديل البحر الصندوقي Tripedalia cystophora بين عيون عدسية مكونة للصور وسلوكيات موجهة بصرياً محددة جيداً، مع جهاز عصبي رُهابلي (rhopalial) سهل التعامل يتكون من حوالي 10 عصبون، مما يجعله نموذجاً ناشئاً للبحث على مستوى الأنظمة في معالجة المعلومات البصرية والتكامل الحسي الحركي. تولد عصبونات منظم ضربات السباحة أوامر حركية تتحكم مباشرة في انقباضات الجرس، ويمكن تسجيل هذه الإشارات خارج الخلية من عصب الساق البشروي لرُهابلي معزول، مما يوفر مؤشراً كمياً للمخرجات الحركية المدفوعة بصرياً. وتتناسب قوة استجابة منظم الضربات، والتي تُقاس كنشاط عصبي معياري مشتق من عدد إشارات منظم الضربات والتردد اللحظي، مع تباين المحفز فوق عتبة انتقال القرار (DTT)، مما يسمح بتقييم متدرج للتكامل الحسي الحركي المدفوع بصرياً. نغطي في هذا البروتوكول تصنيع أقطاب الشفط خارج الخلية، وعزل الرُهابلي، وتكوين غرفة التسجيل، وتقديم المحفز البصري للعين العدسية السفلية، والتحقق من توقيت المحفز على مستوى الأجهزة، ووضع القطب على عصب الساق البشروي، والاستحواذ المتزامن على البيانات الفيزيولوجية الكهربائية وبيانات المحفز باستخدام أجهزة مختبرية قياسية.
المقدمة
يُعد فهم كيفية معالجة الجهاز العصبي للمعلومات الحسية وترجمتها إلى سلوك تكيُّفي تحديًا مركزيًا في علوم الأعصاب. وقد تم إحراز تقدم كبير في الكائنات النموذجية الكبيرة والمعقدة، مثل Drosophila melanogaster، التي مكّن دماغها المكون من حوالي 20,0 عصبون من التشريح التفصيلي لتنظيم الدوائر العصبية1، من بين نماذج أخرى قابلة للتطويع جينيًا ومزودة بأدوات متطورة للتصوير ورسم خرائط الدوائر. ومع ذلك، فإن هذه التعقيدات ذاتها في هذه الأنظمة تجعل من الصعب تحقيق فهم كامل على مستوى النظام للعلاقة بين المدخلات الحسية، والحوسبة العصبية، والمخرجات السلوكية. وفي الطرف الآخر من طيف التعقيد، توفر الأنظمة الصغيرة المخططة بالكامل، مثل نظام Caenorhabditis elegans الذي يتكون من 302 عصبون2، من بين نماذج أخرى ذات عدد عصبونات أدنى، حجمًا قابلاً للدراسة ولكنها تفتقر إلى العيون المكوّنة للصور والسلوكيات الموجهة بصريًا التي تعتمد عليها.
Tripedalia cystophora، وهي قنديل البحر الصندوقي الكاريبي (الشكل 1A)، بدأت تبرز كنظام نموذجي لمعالجة المعلومات البصرية على مستوى الأنظمة والتكامل الحسي الحركي، حيث تشغل موقعاً مميزاً بين هذين الطرفين3. وقد صُمم البروتوكول الموصوف هنا (الشكل 1) لجعل الإمكانات التجريبية الكاملة لهذا الحيوان متاحة لمجتمع علوم الأعصاب على نطاق أوسع.
يمتلك T. cystophora جهازاً بصرياً يتميز بتطور ملحوظ بالنسبة لحيوان بهذا التعقيد العصبي. وتحمل كل واحدة من البنى الحسية الأربع التي تسمى الروپاليا (rhopalia) ست عيون، بما في ذلك عينان عدسيتان مكونتان للصور: العين العدسية العلوية (ULE) والعين العدسية السفلية (LLE)4 (الشكل 1B). وهذه ليست مجرد أعضاء مستقبلة للضوء، بل هي مجهزة بعدسة ذات معامل انكسار متدرج من نوع ماتيسن (Matthiessen)، وهو تصميم عدسي يوجد أيضاً في عيون الفقاريات، وشبكية مقلوبة حيث يتصل حوالي 60 مستقبل ضوئي في العين العدسية السفلية و40 في العين العدسية العلوية مباشرة بعصبونات من الدرجة الثانية5,6,7. ويشير التركيب الجزيئي لآلية استقبال الضوء، بما في ذلك أوبسينات اللاسعات (cnidops opsins) المناظرة لأوبسينات c-opsins في الفقاريات ومكونات تحويل الإشارات الضوئية المرتبطة بها8,9,10، بقوة إلى أن هذه مستقبلات ضوئية مفرطة الاستقطاب، مما يضع الجهاز البصري لـ T. cystophora في نفس الفئة الوظيفية العامة لعين الفقاريات على الرغم من أصله التطوري المستقل.
ومن الأهمية بمكان أن هذه الاستثمارات البصرية تقابلها سلوكيات موجهة بصرياً، ومعقدة، وقابلة للتوصيف تجريبياً. يتنقل نوع T. cystophora في موطن المانجروف المعقد بصرياً باستخدام الملاحة طويلة المدى واكتشاف أعمدة الضوء التي تساعد في الحفاظ على موضعه داخل الموطن1,12، وسلوك تجنب العوائق للتنقل حول الجذور الدعامية المغمورة12,13,14. ويذهب الإطار العصبي السلوكي الذي يستند إليه هذا العمل إلى أن السلوك هو القراءة الوحيدة الصحيحة للمعالجة الحسية في الحيوانات غير الناطقة. وبما أننا لا نستطيع سؤال الحيوانات عما تدركه، يجب تكييف التصميم التجريبي مع المثيرات التي يمكن للحيوان اكتشافها وفهمها، ومع السلوكيات التي يكون الحيوان قادراً على أدائها. وهذا يعني أن الأسئلة التجريبية يجب أن تُصاغ وفقاً لمنظور الحيوان، لا منظور الباحث. ويجسد سلوك تجنب العوائق لدى T. cystophora هذا المبدأ؛ إذ إن بشرة قنديل البحر الصندوقي تتكون من طبقة خلوية واحدة فقط، مما يجعل الاصطدام بجذر دعامي مغمور مميتاً وقد يؤدي إلى تلف جسده الهش. وبما أن التكامل بين الروباليات يحدث فقط في المراحل اللاحقة عبر العصب الحلقي15، فلا يوجد نظام عصبي روبالي (RNS) واحد يستقبل المدخلات الثنائية المتداخلة المطلوبة لحساب العمق من التفاوت الاستريوسكوبي. بدلاً من ذلك، يستغل الحيوان خاصية أساسية للبصريات تحت الماء: وهي أن التباين بين الجسم والمياه المحيطة يتلاشى بسرعة مع زيادة المسافة. وبناءً على ذلك، فإن العائق عالي التباين هو عائق قريب، مما يشكل تهديداً فورياً، بينما يكون العائق منخفض التباين بعيداً وغير مهدد بعد. يستخدم الحيوان التباين كبديل للمسافة16. وفي الحيوانات ذات السلوك الحر، يعتمد سلوك تجنب العوائق (OAB) على قرار "الانطلاق/عدم الانطلاق"؛ حيث يتم تحفيز الحدث عندما يكتشف الحيوان عائقاً تحت الماء يتجاوز تباينه عتبة انتقال القرار (DTT)، وهي العتبة التي يكون فوقها العائق قريباً بما يكفي ليشكل تهديداً، ومن ثم يبدأ استجابة الانطلاق: 3–5 انقباضات سريعة للجرس، ودوران بزاوية 120–180°، وسباحة سريعة بعيداً عن العائق14 (الشكل 1C). وتعكس استجابة منظم ضربات القلب المتدرجة فوق عتبة DTT درجة إلحاح التهديد16. وبذلك يوفر سلوك OAB مقايسة سلوكية سهلة التعامل للغاية للتكامل الحسي الحركي: حيث يتحكم معامل بصري واحد ومحدد بدقة (التباين) في مخرجات حركية نمطية وقابلة للقياس، مما يجعله نظاماً مثالياً لاستقصاء الأساس العصبي لاتخاذ القرارات الموجهة بصرياً.
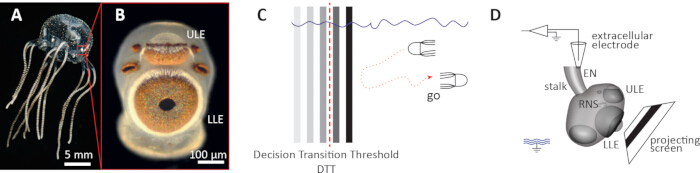
الشكل 1نظرة عامة على الـ Tripedalia cystophora تحضير الروباليوم (rhopalium) المعزول للتسجيل الفيزيولوجي الكهربائي خارج الخلوي. (A) بالغ *T. cystophora* ميدوزا (قنديل البحر). شريط المقياس: 5 مم. يشير المربع الأحمر إلى موقع أحد الـ rhopalium (الأعضاء الحسية) على حافة المظلة. (Bلقطة مقربة لروباليوم (rhopalium) معزول. تُعد العين ذات العدسة العلوية (ULE) والعين ذات العدسة السفلية (LLE) من العيون المكونة للصور. شريط المقياس: 100 µmالصورة بواسطة Dan-Eric Nilsson، أُعيد إنتاجها بإذن. (سيتوضيح تخطيطي لسلوك تجنب العوائق (OAB). دون عتبة انتقال القرار (DTT، الخط المتقطع الأحمر)، يستمر الحيوان في السباحة نحو العائق (عدم الانطلاق). وفوق عتبة انتقال القرار، يبدأ سلوك تجنب العوائق (الانطلاق).د(شكل تخطيطي لتحضير الفيزيولوجيا الكهربائية للروباليوم (rhopalium) المعزول. يتم وضع الروباليوم في مواجهة شاشة عرض مائلة. يسجل القطب الكهربائي خارج الخلوي إشارات منظم ضربات السباحة من عصب السويقة البشروي (EN). RNS: الجهاز العصبي للروباليوم؛ ULE: العين ذات العدسة العلوية؛ LLE: العين ذات العدسة السفلية؛ EN: عصب السويقة البشروي. يشير رمز التأريض إلى القطب المرجعي للحمام المائي.) يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
إن الركيزة العصبية التي تتوسط هذه المعالجة البصرية هي RNS، والتي تتكون من حوالي 10 عصبون لكل rhopalium17. وعلى الرغم من هذا العدد المحدود من العصبونات، فإن RNS تتميز ببنية معمارية متطورة. وتشير الأدلة الكيميائية النسيجية المناعية إلى أنها منظمة في مجموعات منفصلة من العصبونات التي تعبر عن ملفات نيوروببتيدية متميزة18، وهو ما يتفق مع بنية معالجة مقسمة إلى حجيرات. ويُقترح أن المعلومات البصرية يتم معالجتها من خلال مجموعات تذبذبية تابعة (subOCs)، يرتبط كل منها بعين محددة في rhopalium، والتي تلتقي جميعها في مجموعة تذبذبية نهائية (trmOC) — ويُفترض أنها تقابل مجموعة خلايا منظم الخطى (pacemaker) التي تولد إشارة المخرجات الحركية التي تتحكم في انقباضات الجرس3. ونحن نقترح أن trmOC تدمج المعلومات الحسية المعالجة من subOCs وتولد إشارة منظم الخطى للسباحة التي تحرك المخرجات الحركية السلوكية، وأن التزامن بين subOCs و trmOC يكمن وراء تحويل المدخلات البصرية إلى مخرجات تحكم سلوكية3 (الشكل 2).
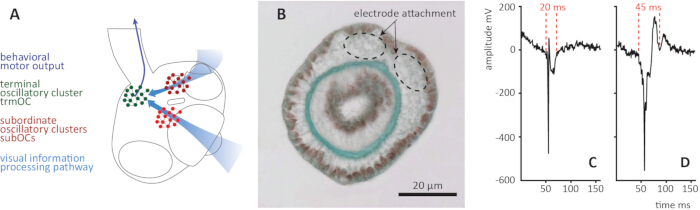
الشكل 2أصل الدائرة العصبية والتحديد الفيزيولوجي الكهربائي لإشارة منظم ضربات السباحة في Tripedalia cystophora. (Aمخطط للجهاز العصبي الرهابي. تُعالَج المعلومات البصرية عبر مجموعات تذبذبية تابعة (subOCs، باللون الأحمر) مرتبطة بالعيون الفردية، وتتقارب نحو المجموعة التذبذبية النهائية (trmOC، باللون الأخضر). ويُقترح أن تقوم المجموعة التذبذبية النهائية (trmOC) بدمج المعلومات الحسية المعالجة من المجموعات التذبذبية التابعة وتوليد إشارة منظم ضربات السباحة التي تقود المخرج الحركي السلوكي. تشير الأسهم ذات اللون الأزرق الفاتح إلى مسار معالجة المعلومات البصرية؛ بينما يشير السهم ذو اللون الأزرق الداكن إلى المخرج الحركي السلوكي.Bصورة مجهرية بالإرسال الإلكتروني (TEM) لسطح الساق البشرية المقطوعة عرضياً. تشير الدوائر المتقطعة إلى نقطتي اتصال عصب الساق البشرية متشعب الفرعين على السطح الفموي للساق، وهو ما يتوافق مع مواقع وضع أقطاب التسجيل.سيإشارة شبيهة بجهد الفعل. يتميز شكل الموجة بانحراف حاد وضيق بمدة زمنية تبلغ 20 ميلي ثانية تقريبًا (مشار إليها بخطوط حمراء متقطعة).د(إشارة منظم ضربات السباح المنبعثة من trmOC. يكون شكل الموجة أعرض، بمدة مميزة تبلغ 45 ميلي ثانية تقريبًا (مشار إليها بخطوط حمراء متقطعة)، ويظهر مورفولوجيا مركبة تعكس النشاط التراكمي لعدة عصبونات trmOC. وعلى الرغم من أن سعات الإشارة متقاربة بين نوعي الإشارات، إلا أن مدة شكل الموجة ومورفولوجيتها هما معيارا التمييز الموثوقان للتحليل اللاحق. جميع القيم الفيزيولوجية الكهربائية هي قيم ما بعد التضخيم (×10). عُدلت بإذن من Bielecki et al.24. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تخلق هذه البنية فرصة تجريبية استثنائية؛ حيث تعمل إشارة منظم ضربات السباحة الناتجة عن trmOC على تحفيز انقباضات الجرس بنمط واحد لواحد بدقة19، ويمكن تسجيلها خارج خلويًا من العصب الساقي البشروي لـ rhopalium معزول13,20. وهذا يعني أنه يمكن مراقبة الأوامر الحركية المستثارة بصريًا، وبالتالي الاستجابات السلوكية الموجهة بصريًا، باستخدام طرق الفسيولوجيا الكهربائية في تحضير تم فيه إزالة المؤثرات الحركية نفسها بالكامل14. وبذلك يشغل الـ rhopalium المعزول منطقة وسطى منهجية يصعب تحقيقها في أنظمة أخرى: فهو يوفر التحكم التجريبي لتحضير مختزل، بما في ذلك التحديد الدقيق للمحفزات البصرية المكانية والزمانية، مع الاحتفاظ بقراءة كمية مباشرة للمخرج العصبي ذي الصلة بالسلوك. في الظروف غير المضطربة، تحدث إشارات منظم الضربات بتردد 0.5–1 Hz؛ وتتميز استجابات تجنب العوائق المستثارة بصريًا بزيادات تصل إلى 2–3 Hz، مما يوفر نافذة إشارة واضحة للتحليل14 (الشكل 1D).
تجعل هذه المجموعة من الخصائص تحضير الـ rhopalium المعزول من T. cystophora مناسباً جداً للاستقصاء على مستوى الأنظمة للمعالجة البصرية والتكامل الحسي الحركي. ويعد هذا التحضير ملائماً للباحثين الذين يسعون إلى دراسة المعالجة البصرية، أو التكامل الحسي الحركي، أو ديناميكيات الشبكة التذبذبية في جهاز عصبي سهل التعامل معه، يمتلك عيوناً مكونة للصور وسلوكيات موجهة بصرياً وموصوفة بدقة4. ويتطلب هذا التحضير معدات الفيزيولوجيا الكهربائية القياسية، وجهاز عرض تجاري معدلاً، ومجهر تشريح، ويمكن تجهيزه في مختبر لا يتوفر على بنية تحتية متخصصة. كما يمكن تنفيذ نموذج التعلم الميكانيكي البصري الترابطي — وهو الاقتران الترابطي للتحفيز البصري والحسي الميكانيكي المتزامن — والذي تم وصفه سابقاً لهذا التحضير14، كإضافة إلى بروتوكول التسجيل الأساسي الموضح هنا.
البروتوكول
لم تتطلب هذه الدراسة موافقة من لجنة أخلاقيات التعامل مع الحيوانات. تقع اللاسعات، بما في ذلك Tripedalia cystophora، خارج نطاق التوجيه 2010/63/EU بشأن حماية الحيوانات المستخدمة للأغراض العلمية، والذي ينطبق على رأسيات الأرجل والفقاريات فقط. جُمعت الحيوانات المستخدمة في هذه الدراسة من جداول المانغروف قبالة لا بارغويرا، بورتوريكو، الولايات المتحدة الأمريكية، وهي ليست طرفاً في بروتوكول ناغويا بشأن الحصول على الموارد الجينية والتقاسم العادل والمنصف للمنافع الناشئة عن استخدامها؛ ولذلك لم يكن هناك حاجة إلى موافقة مسبقة مستنيرة أو اتفاقية للوصول وتقاسم المنافع. لا تدرج Tripedalia cystophora كنوع مهدد بالانقراض أو محمي بموجب اتفاقية CITES أو أي تشريعات وطنية سارية للحماية من الانقراض.
1. إعداد المنصة وسلسلة الإشارة
ملاحظة: جميع المكونات المادية وتوصيلاتها موضحة في الشكل 3. يُرجى الرجوع إلى الشكل 3 طوال هذا القسم. يجب إكمال جميع الخطوات الواردة في هذا القسم قبل التعامل مع الحيوان. لا يتم ملء غرفة التسجيل بمياه البحر في هذه المرحلة.
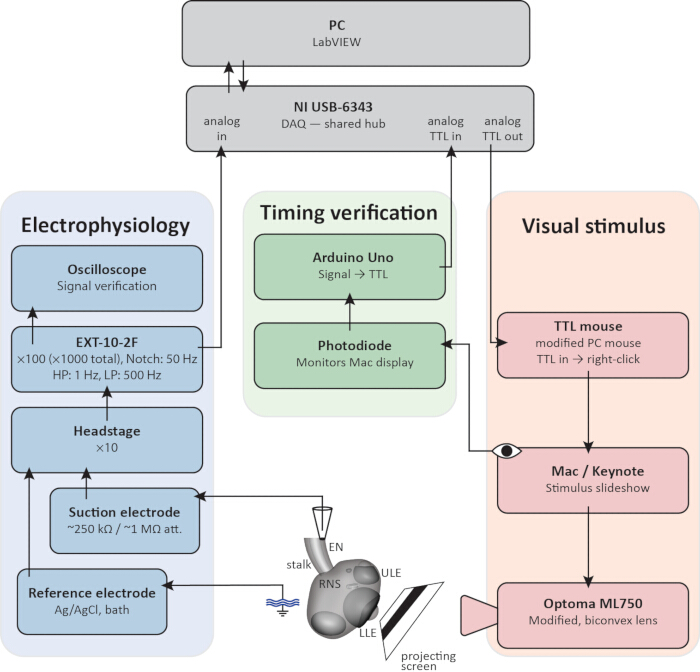
الشكل 3مخطط التوصيل لتحضير الفسيولوجيا الكهربائية خارج الخلوية للمجس الحسي (rhopalium) المعزول. يعمل الكمبيوتر الذي يشغل برنامج VI ووحدة الحصول على البيانات (DAQ) (في الأعلى، باللون الرمادي) كمركز تكامل مشترك لجميع سلاسل الإشارات الثلاث. سلسلة الفيزيولوجيا الكهربائية (باللون الأزرق): يتم تسجيل إشارات منظم ضربات السباحة من العصب الساقي البشروي (EN) عبر قطب امتصاص (طرف حر ~250 kΩ، طرف متصل ~1 MΩ) وقطب مرجعي من حبيبات Ag/AgCl يوضع في الحوض، ويتم تضخيمها بواسطة مرحلة رأس EXT-10-2F (×10) والمضخم الرئيسي (×100، الإجمالي ×10) مع ترشيح تمرير النطاق (مرشح تمرير عالي: 1 Hz، مرشح تمرير منخفض: 500 Hz) وترشيح ثلمي بتردد 50/60 Hz، وتتم مراقبتها عبر راسم الإشارات (oscilloscope)، واستحصالها بواسطة وحدة DAQ. سلسلة المحفز البصري (باللون الأحمر): تعمل نبضة TTL من وحدة DAQ على تقديم عرض شرائح المحفز عبر فأرة كمبيوتر معدلة (TTL mouse)، مما يشغل جهاز عرض DLP (معدل، عدسة محدبة مزدوجة) لإسقاط المحفز على الجدار الشاشي المائل لغرفة التسجيل أمام العين ذات العدسة السفلية (LLE). سلسلة التحقق من التوقيت (باللون الأخضر): يقوم صمام ثنائي ضوئي بمراقبة المربع المؤشر باللونين الأبيض والأسود على شاشة الكمبيوتر، والذي يتحول من الأبيض إلى الأسود عند بدء المحفز ويعود إلى الأبيض عند انتهائه؛ ويقوم جهاز Arduino Uno بتحويل هذه الإشارة إلى نبضة TTL تسجلها وحدة DAQ كنافذة محفز تم التحقق منها. RNS: الجهاز العصبي الروبالي؛ ULE: العين ذات العدسة العلوية؛ LLE: العين ذات العدسة السفلية؛ EN: العصب الساقي البشروي. جميع قيم السعة هي قيم ما بعد التضخيم (×10). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
- بناء غرفة التسجيل
- صمم أو اطبع ثلاثياً غرفة تسجيل ذات أبعاد داخلية كافية لاستيعاب العينة، وطرف الماصة الدقيقة للتثبيت، وطرف قطب التسجيل.
ملاحظة: تتمثل ميزات التصميم ذات الأهمية الوظيفية الحاسمة في حافة غطاء الشريحة، التي تضع الروباليوم (rhopalium) عند طرف غطاء الشريحة على مسافة 2 ملم من شاشة الإسقاط، وأبعاد الشاشة (16 ملم × 12 ملم، مائلة بزاوية 60°)، والتي تحدد معاً الزاوية الظاهرية للمنبه البصري عند العين ذات العدسة السفلية. تتكون الحجرة الموضحة هنا من قاعدة بمساحة 30 مم × 30 مم وبسُمك جدار يبلغ 5 مم تقريباً. وتتوفر الرسومات الفنية في الشكل 4. - ضع غطاء شريحة عد الخلايا (hemacytometer) من نوع Roth وبمقاس 20 مم × 26 مم على حواف غطاء الشريحة في غرفة التسجيل. يستقر غطاء الشريحة في مكانه بفعل الطفو السلبي ولا يتطلب تثبيتاً بمادة لاصقة.
- ثبّت غرفة التسجيل على منصة المجهر باستخدام الثقوب النافذة M6. يُنصح باستخدام منصة نقل ثلاثية المحاور (x-y-z)، حيث تسهل عملية المحاذاة الدقيقة للصورة المسقطة على جدار شاشة الإسقاط الخاص بغرفة التسجيل.
- قم بتوصيل منافذ المدخل والمخرج لقنوات التدفق في غرفة التسجيل (الشكل 4أإلى حمام مائي مضبوط درجة الحرارة بماء متداول عند 28 °C.
ملاحظة: يجب الحفاظ على درجة حرارة غرفة التسجيل ضمن نطاق 28–30 °C طوال فترة التجربة.
- صمم أو اطبع ثلاثياً غرفة تسجيل ذات أبعاد داخلية كافية لاستيعاب العينة، وطرف الماصة الدقيقة للتثبيت، وطرف قطب التسجيل.
- التكوين البصري (الشكل 3، سلسلة من المثيرات البصرية)
تنبيه: لا تنظر إلى مخرجات جهاز العرض مباشرة، خاصةً قبل تركيب مرشحات الكثافة المحايدة (القسم 4)؛ إذ يؤدي إزالة نظام العدسات الخاص بالشركة المصنعة إلى إلغاء تخفيف الضوء المدمج، مما قد يتسبب في إصابة العين.- قم بإزالة نظام العدسات الخاص بالشركة المصنعة من جهاز العرض.
- ثبِّت عدسة محدبة الوجهين مفردة (f = 30 مم) أمام فتحة مخرج جهاز العرض لتركيز الصورة المسقطة على جدار شاشة العرض في غرفة التسجيل.
- قم بمحاذاة جهاز العرض بحيث تكون الصورة المعروضة بؤرية (في بؤرة التركيز) على جدار شاشة العرض في غرفة التسجيل، وبحيث تملأ أبعاد الشاشة (16 مم × 12 مم).
ملاحظة: لا يتم إدراج مرشحات الكثافة المحايدة في هذه المرحلة، بل يتم تحديد قوة المرشح المناسبة تجريبياً أثناء المعايرة البيولوجية في القسم 4.
- تجميع سلسلة الإشارات (الشكل 3، والفيزيولوجيا الكهربائية، وسلاسل التحقق من التوقيت)
- قم بتوصيل حامل القطب الكهربائي بذراع رأس التضخيم (headstage arm) المرفقة مع المضخم EXT-10-2F، ثم قم بتثبيت ذراع رأس التضخيم في أحد أجهزة التلاعب الدقيقة من طراز MM33.
- قم بتوصيل مرحلة الرأس (headstage) بالمضخم الرئيسي. تبلغ قيمة كسب مرحلة الرأس ×10. اضبط كسب المضخم الرئيسي على ×10، مما يعطي تضخيماً إجمالياً قدره ×10.
- قم بتوصيل مخرج المضخم بقناة إدخال تماثلية في محول تماثلي-رقمي (DAQ).
- قم بتوصيل جهاز الحصول على البيانات (DAQ) بجهاز الكمبيوتر الذي يعمل ببرنامج LabVIEW (الإصدار 2018 أو إصدار مماثل) عبر منفذ USB.
- قم بتوصيل مخرج TTL الخاص بـ Arduino Uno بقناة إدخال تماثلية مخصصة في نظام الحصول على البيانات (DAQ).
- ضع الثنائي الضوئي فوق المربع المؤشر باللونين الأبيض والأسود على شاشة الكمبيوتر (الخطوة 1.4.2). قم بتوصيل الطرف الموجب للثنائي الضوئي بمدخل التماثلي A0 في لوحة Arduino Uno، والطرف السالب بالأرضي. يتوفر المخطط البرمجي (sketch) الخاص بـ Arduino، والذي ينفذ منطق مراقبة الثنائي الضوئي وعتبة مخرجات TTL، كمواد تكميلية (الملف التكميلي 1).
- تصميم هندسة المثير (الشكل 3, سلسلة من المثيرات البصرية)
- صمم المثير البصري في برنامج العرض على شكل شريط رمادي عمودي متحرك على خلفية بيضاء، لمحاكاة عائق من الجذور الدعامية لأشجار المانغروف. اضبط الخلفية على أقصى درجة من اللون الأبيض.
ملاحظة: يحدد مستوى اللون الرمادي للشريط بالنسبة للخلفية البيضاء درجة تباين المنبه، ويتم تحديده أثناء توصيف الإشعاع في القسم 4. يجب أن يشغل الشريط 30° الزاوية البصرية للعدسة السفلية للعين (مقاسةً عند مركز المجال البصري) والتحرك عند 10° s-1 عبر كامل عرض المجال البصري، مع البقاء داخل المجال البصري في جميع الأوقات. ويمكن تحديد الزاوية البصرية لعائق مُسقط من خلال:
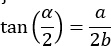
حيث تمثل α الزاوية البصرية، ويمثل a عرض سمة الصورة، ويمثل b المسافة من العين في العدسة السفلية إلى الشاشة. وقد نُفذت حركة الشريط كحركة كائن مستمرة واحدة (على سبيل المثال: بناء "Move" في برنامج Keynote) طُبقت على كائن الشريط ضمن شريحة واحدة، بدلاً من تنفيذها كسلسلة من الشرائح المنفصلة. ويُقدم ملف محفز نموذجي ينفذ هذه الحركة كمادة تكميلية (الملف التكميلي 2وبما أن عرض الشريط والسرعة يتم تحديدهما بالزاوية البصرية وليس بوحدات فيزيائية، فيجب تحويل كليهما إلى المليمتر والمليمتر/ثانية باستخدام المعادلة المذكورة أعلاه، وذلك بناءً على مسافة العمل المحددة وأبعاد شاشة غرفة التسجيل، قبل إدخالهما كحجم للكائن ومدة للرسوم المتحركة في برنامج العرض. - ضع مربع مؤشر صغير باللونين الأبيض والأسود في أحد أركان الشريحة، بحيث يتغير لونه من الأبيض إلى الأسود بالتزامن مع بدء حركة الشريط، ويعود إلى اللون الأبيض عند انتهاء المثير. قم بمراقبة هذا المربع على شاشة الكمبيوتر باستخدام الثنائي الضوئي (photodiode) للتحقق من توقيت المثير في الخطوة 3.3.
ملاحظة: يظهر مربع المؤشر باللونين الأبيض والأسود بالضرورة ضمن الصورة المسقطة على شاشة غرفة التسجيل، حيث يجب أن يكون جزءاً من الشريحة ليظهر على شاشة الكمبيوتر أثناء العرض. ومع ذلك، تم تحديد حجم المربع بحيث يملأ فقط منطقة الاستقبال الخاصة بالثنائي الضوئي (photodiode) على شاشة الكمبيوتر. وعند إسقاطه على شاشة الغرفة، يكون المربع صغيراً بما يكفي لدرجة أنه لا يمكن تمييزه كسمة بصرية منفصلة بواسطة عدسة العين السفلية، كما أن مساهمته في السطوع العام للشاشة ضئيلة ولا تؤدي إلى تحفيز استجابات التشغيل/الإيقاف الضوئية (light ON/OFF responses).4,13,20. - قم بتمرير شرائح برنامج العرض التقديمي باستخدام مشغل آلي أو يدوي.
- الخيار (أ) (آلي): قم ببناء فأرة تعتمد على منطق ترانزيستور-ترانزيستور (TTL) عن طريق تعديل فأرة كمبيوتر قياسية بحيث تحل نبضة TTL قصيرة بجهد 5 فولت مستلمة من مخرج نظام الحصول على البيانات (DAQ) محل إشارة النقر بزر الفأرة الأيمن. صِل فأرة TTL بجهاز كمبيوتر العرض عبر منفذ USB، ثم قم بتكوين برنامج العرض للانتقال إلى الشرائح التالية عند استلام إدخال نقرة بالزر الأيمن.
- الخيار (ب) (يدوي): تفعيل تقديم الشريحة يدويًا عند بداية التحفيز المحددة. ونظرًا لأن نافذة التحفيز التي تم التحقق منها بواسطة Arduino (القناة 3)، وليس إشارة التفعيل نفسها، هي التي تُستخدم كسجل توقيت نهائي للتحليل (الخطوة 6.2.1)، فإن التفعيل اليدوي لا يؤثر على دقة التوقيت، وإن كان يتطلب توقيتًا دقيقًا من المشغل أثناء عملية الاستحواذ، وهو أقل ملاءمة من الخيار الآلي.
- صمم المثير البصري في برنامج العرض على شكل شريط رمادي عمودي متحرك على خلفية بيضاء، لمحاكاة عائق من الجذور الدعامية لأشجار المانغروف. اضبط الخلفية على أقصى درجة من اللون الأبيض.
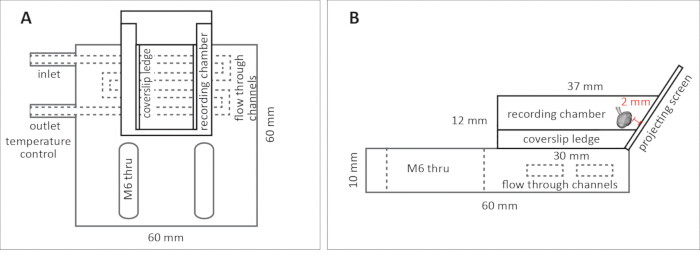
الشكل 4غرفة تسجيل لتحضير الروپاليوم المعزول. (A) مخطط من منظور علوي. تحيط بغرفة التسجيل قنوات تدفق للتحكم في درجة الحرارة عبر سترة مائية، مع توضيح منافذ الدخول والخروج (القطر الخارجي 4.2 مم، القطر الداخلي 2.5 مم). تمتد حواف غطاء الشريحة طولياً على طول كلا الجدارين الداخليين للغرفة، مما يدعم غطاء الشريحة الخاص بمقياس كرات الدم في منتصف ارتفاع الغرفة. توفر الثقوب النافذة من نوع M6 نقاط تثبيت لتأمين الغرفة على منصة المجهر. الأبعاد الإجمالية: 60 مم × 60 مم. (B) مخطط للمنظر الجانبي مع الأبعاد. يبلغ الارتفاع الداخلي لغرفة التسجيل 12 مم، وعرضها العلوي 37 مم. يشكل أحد جدران الغرفة شاشة العرض، وهي مائلة بزاوية 60° نسبةً إلى الوضع الرأسي ليتماشى مع المحور البصري لعدسة العين السفلية. وتعمل حافة الغطاء الزجاجي على وضع الـ rhopalium عند حافة الغطاء الزجاجي المواجهة لشاشة العرض. وتعكس مسافة العمل البالغة 2 ملم الموضحة تكويناً محدداً للحجرة والشاشة وجهاز العرض الموصوف في هذا البروتوكول؛ لذا يجب على القراء الذين يطبقون هذا التصميم على أجهزة مختلفة إعادة حساب مسافة العمل المناسبة لإعداداتهم الخاصة باستخدام المعادلة الواردة في الخطوة 1.4.1. وتمر قنوات التدفق للتحكم في درجة الحرارة داخل قاعدة حجرة التسجيل ولا تلامس العينة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
2. تصنيع القطب الكهربائي
ملاحظة: تتكون أقطاب الشفط خارج الخلوية من أنابيب شعرية زجاجية ذات رؤوس مستدقة تم سحبها لإنشاء فتحة مناسبة للالتصاق بالشفط وتسجيل الجهود الكهربائية. وتعمل الشعيرة الزجاجية كعازل كهربائي، مما يضمن تسجيل الجهود عند الطرف فقط. ويتصل سلك فضي مدرج في الشعيرة بالمضخم. يحقق هذا التكوين تسجيلات متعددة الوحدات، حيث يتم التقاط الجهود الكهربائية من مجموعات خلايا منظم ضربات القلب عند طرف القطب الكهربائي وقياسها مقابل قطب مرجعي موضوع في الحوض. يجب تصنيع الأقطاب في يوم الاستخدام، قبل جلسة التسجيل. فالأقطاب المخزنة عرضة لانسداد الطرف، مما يمنع سحب مياه البحر إلى الشعيرة ويجعل القطب غير صالح للعمل. تتميز الشعيرات الزجاجية المسحوبة برؤوس حادة وهشة. يجب التعامل معها بحذر أثناء التصنيع لتجنب إصابات الوخز، والتخلص من الشعيرات المكسورة أو المرفوضة أو المستخدمة في حاوية مخصصة للأدوات الحادة.
- سحب الأنبوب الشعري الزجاجي
- ضع أنبوباً شعرياً من زجاج البوروسيليكات (1.16 mm ID × 2.00 mm OD × 80 mm L) في جهاز سحب الماصات الدقيقة (micropipette puller).
- نفذ برنامج السحب التالي: السطر 1 (×1): الحرارة 535، السحب 0، السرعة 12، الزمن 200، الضغط 60، التدرج 540. الأسطر 2-4 (×3): الحرارة 532، السحب 0، السرعة 12، الزمن 100.
ملاحظة: هذه المعلمات خاصة بالجهاز والزجاج والفتيل المستخدم، وقد تتطلب تعديلاً عند استخدام جهاز مختلف أو بعد تآكل الفتيل؛ لذا يجب التعامل معها كنقطة بداية وليس كمواصفات ثابتة. - أخرج القطب المسحوب بعناية وخزنه بحيث يكون الطرف متجهاً للأعلى لمنع التلف الميكانيكي.
- صقل طرف القطب
- اصقل الطرف لإنشاء سطح أملس محكم الإغلاق تحت الفراغ ويكون عمودياً على محور الأنبوب الشعري. ارجع إلى الخيارين الموضحين أدناه؛ يوصى بالخيار أ (جهاز الصقل الدقيق microforge).
- الخيار أ: الصقل باستخدام جهاز الصقل الدقيق (microforge) (موصى به)
- ثبت القطب المسحوب في جهاز الصقل الدقيق.
- تحت تكبير 600× (عدسة شيئية 40×، وعدسة عينية 15×)، ضع الطرف بالقرب من فتيل التسخين.
- سخن واصقل الطرف حتى تصل قياسات الفتحة إلى مقاومة تبلغ حوالي 250 kΩ تقريباً (ما يعادل ~1 MΩ عند ملامسة النسيج). عند تكبير 60×، يتوافق هذا مع ثلاثة تدريجات تقريباً على مقياس الشبكة في العدسة العينية.
ملاحظة: لقياس مقاومة القطب، قم بتوصيل مقياس متعدد (multimeter) بين قلب موصل BNC (المتصل بالسلك الفضي للقطب) وقطب المرجع في الحوض (قرص Ag/AgCl)، وذلك بمجرد ملء القطب بمياه البحر. لا يلزم قياس المقاومة الكهربائية للتسجيلات القياسية المستثارة بصرياً، حيث تكون جودة الإشارة هي المعيار الأساسي لمدى ملاءمة القطب (الخطوة 6.1.5)؛ بينما يصبح القياس ضرورياً عند استخدام هذا التحضير في نموذج التعلم الترابطي الذي يتطلب توصيلاً محسوباً للتيار، وهو أمر خارج نطاق هذا البروتوكول14. - اترك القطب ليبرد تماماً قبل إزالته من جهاز الصقل الدقيق.
- الخيار ب: الصقل اليدوي بدون جهاز الصقل الدقيق
تنبيه: تتضمن هذه الخطوة استخدام لهب مكشوف (موقد إيثانول). ابعد المواد القابلة للاشتعال عن اللهب واتبع احتياطات المختبر القياسية عند التعامل مع اللهب المكشوف.- أمسك طرف الأنبوب الشعري المسحوب لفترة وجيزة في لهب موقد الإيثانول حتى ينصهر الزجاج ويغلق الطرف على شكل قطرة دقيقة.
- اترك الطرف المختوم ليبرد تماماً.
- ضع قطرة من الماء منزوع الأيونات على ورقة صنفرة ناعمة (حبيبات 120) وأمسك الأنبوب الشعري بشكل عمودي على سطح الورقة.
- اصنفر الطرف باستخدام حركات دائرية صغيرة، بالتناوب بين اتجاه عقارب الساعة وعكس اتجاه عقارب الساعة.
- استمر في الصنفرة بعناية حتى يتم سحب كمية صغيرة من الماء المحمل بdebris الزجاج إلى داخل الطرف عن طريق الخاصية الشعرية.
- ثبت أنبوباً مطاطياً في الطرف المقابل للأنبوب الشعري وقم بتوصيله بمحقنة.
- طبق شفطاً خفيفاً لسحب الماء منزوع الأيونات عبر الطرف، لغسل debris الزجاج.
- إذا لم يتم تنظيف debris، اصنفر برفق لفترة إضافية قصيرة وكرر خطوة الغسيل.
ملاحظة: معدل التدفق المستهدف عبر الطرف النهائي هو حوالي 1 cm من عمود الماء لكل 10 s تحت تأثير شفط خفيف. يتم تحديد نجاح تصنيع الطرف بناءً على نتيجة التسجيل (إشارة منخفضة الضوضاء وعالية السعة)، وليس بناءً على مظهر الطرف. حوالي 40%–50% من الأقطاب المصنعة في أي من خياري الصقل تعطي مثل هذه التسجيلات، على الرغم من اختلاف العامل المسبب للفشل بينهما. في حالة الصقل بجهاز microforge (الخيار أ)، يعود الفشل في أغلب الأحيان إلى هندسة المسام غير المنتظمة التي تنشأ أثناء خطوة السحب (الخطوة 2.1)، والتي لا يمكن لصقل الحرارة اللاحق تصحيحها بالكامل. أما في الصقل اليدوي (الخيار ب)، فإن النجاح يعتمد أساساً على مهارة المشغل؛ وأكثر حالات الفشل شيوعاً هي المسام كبيرة الحجم الناتجة عن الصنفرة الزائدة. تزيد المسام المستديرة الملساء وذات الحجم الصحيح بشكل كبير من احتمالية الحصول على تسجيل عالي الجودة، لكنها لا تضمن ذلك — حيث تظل النتيجة الوظيفية هي المعيار الوحيد الذي يهم في النهاية.
- تجميع القطب
- أدخل الأنبوب الشعري المصقول في حامل القطب، مع التأكد من أن سلك Ag/AgCl (الفضة/كلوريد الفضة) ممتد وبدون التواءات داخل الأنبوب الشعري الزجاجي، وثبته في ذراع المرحلة الرأسية (headstage arm) المرفقة مع مضخم EXT-10-2F. ثبت ذراع المرحلة الرأسية في الملاعب الدقيق MM3.
ملاحظة: إذا لم يكن السلك الفضي مكلوراً، فقم بعملية الكلورة كهروكيميائياً عن طريق غمر كل من السلك الفضي للقطب وقطب فضة صلب منفصل في محلول KCl بتركيز 2 M، وتوصيلهما عبر أسلاك معزولة بمصدر تيار مستمر 12 V DC. طبق التيار في فترات زمنية تبلغ حوالي 2-min، مع فحص السلك بصرياً بين الجولات؛ يكون السلك مكلوراً بشكل كافٍ بمجرد أن يصبح داكناً بشكل ملحوظ، وعادة ما يحدث ذلك في غضون 5 min إجمالاً. اشطف السلك جيداً بالماء منزوع الأيونات بعد الكلورة. يمكن أن يتسبب السلك غير المكلور في إزاحة DC كبيرة وغير مستقرة.
تنبيه: تولد الكلورة الإلكتروليتية في محلول KCl غازي الكلور والهيدروجين. يجب إجراء هذه العملية في منطقة جيدة التهوية. تخلص من محلول كلورة KCl المستخدم وفقاً لإرشادات النفايات الخطرة في المؤسسة. - املأ القطب مباشرة قبل التسجيل عن طريق سحب مياه البحر مباشرة من غرفة التسجيل المملوءة إلى داخل الأنبوب الشعري حتى يصل المحلول الداخلي إلى منتصف السلك الفضي. انظر الخطوة 3.1 لمعرفة إجراء الملء.
ملاحظة: لا تتطلب الماصات الدقيقة المستخدمة للتثبيت (Holding micropipettes) المواصفات البصرية أو الكهربائية الخاصة بأقطاب التسجيل. لذا فإن الأقطاب التي تم رفضها أثناء التصنيع (الخطوة 2.2) بسبب القطر المفرط للطرف (مقاومة أقل من 250 kΩ) أو هندسة الطرف غير المركز تكون مناسبة لهذا الغرض ويجب الاحتفاظ بها. لا داعي لتصنيع ماصات تثبيت مخصصة.
- أدخل الأنبوب الشعري المصقول في حامل القطب، مع التأكد من أن سلك Ag/AgCl (الفضة/كلوريد الفضة) ممتد وبدون التواءات داخل الأنبوب الشعري الزجاجي، وثبته في ذراع المرحلة الرأسية (headstage arm) المرفقة مع مضخم EXT-10-2F. ثبت ذراع المرحلة الرأسية في الملاعب الدقيق MM3.
3. التحقق من صحة النظام
يتحقق هذا القسم من أن نظام التسجيل الكامل — بما في ذلك القطب الكهربائي، وسلسلة الإشارات، وعملية تقديم التحفيز، والتحقق من التوقيت — يعمل بشكل صحيح قبل إدخال التحضير التجريبي. وتظهر سلسلة الإشارات الكاملة في الشكل 3. تأكد من أن جميع التوصيلات في مكانها الصحيح قبل المتابعة.
- ملء الحجرة وتحضير القطب الكهربائي
- املأ حجرة التسجيل بمياه بحر مرشحة بمرشح 0.20 µm من خزان الاستزراع. يضمن ذلك استمرارية التركيب الكيميائي بين بيئة الاستزراع وحجرة التسجيل، مما يمنع تعرض الـ rhopalium لمركبات غريبة أو تغيرات في كيمياء المياه قد تؤثر على نشاط منظم ضربات القلب أو حيوية العينة.
- املأ قطب الشفط المخصص للتسجيل عن طريق سحب مياه البحر مباشرة من حجرة التسجيل إلى الشعيرة حتى يصل المحلول الداخلي إلى منتصف السلك الفضي. املأ الماصة الدقيقة (micropipette) الخاصة بالتثبيت بكمية كافية من مياه البحر من حجرة التسجيل لتمكين الالتصاق بالبلورة عن طريق الشفط.
- ضع قطباً كهربائياً من حبيبات Ag/AgCl (فضة/كلوريد الفضة) الملبدة في حمام التسجيل وقم بتوصيله بمدخل المرجع في مرحلة الرأس (headstage).
- التأريض والتحقق من الضوضاء
تنبيه: يعمل هذا الإعداد بمعدات كهربائية على مقربة شديدة من مياه البحر. حافظ على جميع التوصيلات والمعدات الكهربائية بعيداً عن الحجرة وأي انسكابات، واتبع ممارسات السلامة الكهربائية المؤسسية للعمل في البيئات الرطبة.- قم بتأريض جميع الأجهزة في نقطة أرضية مشتركة واحدة (تكوين التأريض النجمي) لمنع حلقات التأريض.
- راقب الإشارة على راسم الإشارات (oscilloscope). تأكد من أن الخط القاعدي نظيف وخالٍ من الضوضاء قبل المتابعة.
ملاحظة: لا تُستخدم أقفاص فاراداي عموماً في مختبرنا للتسجيلات خارج الخلوية، حيث ثبت باستمرار أن التأريض النجمي الصارم أكثر فعالية في القضاء على الضوضاء الكهربائية (50/60 Hz) من التدريع المادي.
- سلسلة التحقق من التوقيت
- قم بتشغيل أداة LabVIEW الافتراضية (VI) (المقدمة كمواد تكميلية، Supplementary File 3). قم بتشغيل الـ VI أثناء عملية التحقق من النظام. يقوم هذا بإرسال نبضة TTL إلى فأرة TTL لتحفيز بناء المثير، ويولد ملف مخرجات بصيغة .txt يسمح بالتحقق من أن جميع القنوات — الإشارة الفيزيولوجية الكهربائية، وLabVIEW TTL، وArduino TTL — قد تم الحصول عليها بشكل صحيح قبل إدخال العينة التجريبية.
ملاحظة: يختلف التأخير بين أمر TTL المسجل في LabVIEW وبداية المثير التي تم التحقق منها بواسطة Arduino بشكل غير متوقع بين التسجيلات ولا يتم حله في هذه المرحلة؛ بل يتم تحديده وتصحيحه بشكل فردي في كل تسجيل أثناء التحليل (الخطوة 7.2.1). - تحقق من أن نبضة TTL القادمة من الـ DAQ تحفز بناء المثير بشكل صحيح، وأن المثير البصري يتم عرضه على شاشة العرض كما هو مصمم.
- تحقق من أن Arduino Uno يكتشف التغير في مربع المؤشر الأبيض والأسود على شاشة الكمبيوتر ويرسل نبضة TTL إلى الـ DAQ.
ملاحظة: يقوم Arduino Uno بأخذ عينات من جهد الثنائي الضوئي (photodiode) عبر analogRead(A0). عندما تنخفض القيمة المأخوذة عن عتبة محددة تجريبياً (61 من نطاق analogRead البالغ 0–1023 في هذا الإعداد)، يتم ضبط دبوس المخرج الرقمي 5 على 5 V (TTL high)؛ وعندما تعود القيمة فوق العتبة، يعود المخرج إلى 0 V. تعتمد هذه العتبة على الإعداد ويجب إعادة معايرتها لكل شاشة وتكوين إضاءة محيطة. - أكد أن TTL نافذة المثير من Arduino Uno قد تم تسجيله بشكل صحيح في ملف .txt الذي ولده LabVIEW VI، جنباً إلى جنب مع القناة الفيزيولوجية الكهربائية وقناة VI الرقمية TTL.
ملاحظة: لا يتم تسجيل إشارة الثنائي الضوئي مباشرة بواسطة الـ DAQ، لأن مخرجات الثنائي الضوئي الخام تحتوي على ضوضاء كبيرة تمنع الكشف الموثوق عن المثير عند مدخل الـ DAQ. يضمن التحويل إلى نبضة TTL نظيفة بواسطة Arduino Uno إشارة توقيت موثوقة ومنخفضة الضوضاء. يتوفر مخطط Arduino الذي ينفذ مراقبة الثنائي الضوئي ومخرج TTL كمواد تكميلية (Supplementary File 1). يتطابق معدل تحديث Arduino البالغ 1 kHz مع معدل أخذ العينات في الـ DAQ، مما يضمن عدم فقدان أي معلومات توقيت. - بمجرد التحقق من جميع القنوات، أفرغ حجرة التسجيل وأخرج القطب الكهربائي من الحجرة استعداداً للقسم 4.
- قم بتشغيل أداة LabVIEW الافتراضية (VI) (المقدمة كمواد تكميلية، Supplementary File 3). قم بتشغيل الـ VI أثناء عملية التحقق من النظام. يقوم هذا بإرسال نبضة TTL إلى فأرة TTL لتحفيز بناء المثير، ويولد ملف مخرجات بصيغة .txt يسمح بالتحقق من أن جميع القنوات — الإشارة الفيزيولوجية الكهربائية، وLabVIEW TTL، وArduino TTL — قد تم الحصول عليها بشكل صحيح قبل إدخال العينة التجريبية.
4. معايرة الضوء وتحديد التباين
ملاحظة: يحدد هذا القسم التكوين البصري الصحيح للتحفيز البصري للعين ذات العدسة السفلية، ويحدد قيم الإشعاع المطلوبة لحسابات التباين. يتم استخدام rhopalium تضحوي لخطوة المعايرة البيولوجية. يتم إجراء توصيف الإشعاع دون أي تحضيرات في الغرفة. يستغرق هذا القسم وقتاً طويلاً؛ إذ قد تتطلب المعايرة البيولوجية، وتوصيف الإشعاع عبر جميع مستويات اللون الرمادي، وحسابات التباين جلسة مخصصة قبل يوم التسجيل. يجب التخلص من الـ rhopalium المستخدم في المعايرة البيولوجية بعد هذا القسم ولا يمكن استخدامه في التسجيلات.
- المعايرة البيولوجية
- املأ غرفة التسجيل بـ 0.20 µm مياه بحر مُرشحة من خزان الاستزراع.
- اعزل الروباليوم (rhopalium) وانقله إلى غرفة التسجيل وفقاً للإجراء الموضح في القسم 5.
- ضع الـ rhopalium على حافة غطاء الشريحة في مواجهة شاشة العرض باستخدام الماصة الدقيقة المُثبِّتة (الشكل 1د).
ملاحظة: يخدم وضع الروباليوم (rhopalium) على حافة غطاء الشريحة بدلاً من سطحه غرضين: أولاً، يمكن وضع حافة غطاء الشريحة على مسافة ثابتة وقابلة للتكرار من شاشة العرض، مما يضمن مسافة عمل متسقة في جميع التسجيلات؛ وثانياً، لا يتطلب الأمر من العين ذات العدسة السفلية النظر عبر غطاء الشريحة الزجاجي لرؤية الشاشة، مما يتجنب التشوه الزاوي للمحفز البصري. تحدد المسافة من حافة غطاء الشريحة إلى شاشة العرض الامتداد الزاوي لجميع المحفزات المعروضة عند العين ذات العدسة السفلية، ويجب الحفاظ على ثبات هذه المسافة في جميع التسجيلات. وفي الغرفة الموصوفة في هذا البروتوكول، تبلغ هذه المسافة 2 مم. - قم بتوصيل قطب التسجيل بعصب السويقة البشرية وفقاً للإجراء الموضح في الخطوة 6.1.
- قدِّم عائقاً بأقصى تباين (c ≈ 1.0، شريط أسود على خلفية بيضاء) يتحرك عبر العرض الكامل للمجال البصري، وقَيِّم استجابة إشارة منظم الخطى (الشكل 1ج; الشكل 5).
ملاحظة: أكد القياس الفوتومتري أن أقصى تباين يمكن تحقيقه هو c ≈ 0.9 بين أفتح وأغمق مستويات اللون الرمادي في نظام العرض المستخدم، وهو ما يعكس النصوع المتبقي في نقطة اللون الأسود بجهاز العرض وليس قصوراً في تصميم المحفز؛ وهذا هو الأساس لتدوين القيمة التقريبية (c ≈ 1.0) المستخدمة في هذا البروتوكول للمحفزات ذات التباين الأقصى.
ملاحظة: (بالغ الأهمية) تتمثل الاستجابة المرضية في زيادة قوية في تردد إشارة منظم الخطى لتتجاوز 2 هرتز، وتظهر على شكل دفقة قصيرة مرتبطة زمنياً عند وصول الحافة الأمامية للعائق إلى مركز المجال البصري، بدلاً من أن تكون مستمرة طوال فترة عرض المثير، مع حدوث 5-15 إشارة تقريباً لمنظم الخطى خلال هذه الدفقة (الشكل 5بتدرج قوة الاستجابة، من حيث التردد وعدد الإشارات، مع تباين المثير؛ لذا يجب أن تكون الاستجابة للمثير ذي التباين الأقصى (c ≈ 1.0) قوية قدر الإمكان، حيث يعكس ذلك التوجه الصحيح لـ LLE، وتثبيت القطب الكهربائي، ومعايرة جهاز العرض، كما يضمن نطاقاً ديناميكياً كافياً لتمييز الاستجابات عند مستويات التباين المنخفضة. ويؤكد هذا أن المستقبلات الضوئية تعمل ضمن نطاقها الديناميكي وليست في حالة تشبع بسبب الإشعاع المفرط. إذا لم يُلاحظ أي تعديل في تردد منظم ضربات القلب على الرغم من أن التحضير السليم يظهر نشاطاً تلقائياً لمنظم ضربات القلب يتراوح بين 0.5 و1 هرتز، فيجب الاشتباه في حدوث تشبع للمستقبلات الضوئية نتيجة الإشعاع المفرط. أدخل مرشح كثافة محايدة (على سبيل المثال Thorlabs NE01A، بكثافة بصرية = 0.1، حسب الحاجة) في مجموعة العدسات وأعد إجراء المعايرة. زد من التوهين تدريجياً حتى يتم الحصول على استجابة قوية لتردد منظم ضربات القلب. يجب إجراء جميع التسجيلات اللاحقة مع الإبقاء على تكوين المرشح هذا في مكانه. - بمجرد الحصول على استجابة بيولوجية مرضية، يتم تسجيل تكوين مرشح الكثافة المحايدة. ويكون هذا التكوين ثابتاً لجميع التسجيلات اللاحقة باستخدام هذا الإعداد البصري.
- أخرج الروباليوم (rhopalium) من غرفة التسجيل وتخلص منه. لا يمكن استخدام الروباليوم المستخدم في المعايرة البيولوجية لإجراء التسجيلات بسبب الوقت المنقضي خلال إجراء المعايرة.
- توصيف الإشعاعية
- أفرغ غرفة التسجيل وتأكد من أن سطح شاشة العرض جاف. ضع ليفة المطياف مباشرة على سطح شاشة العرض وبشكل عمودي عليه.
ملاحظة: معظم الألياف الضوئية للمطياف ليست مقاومة للماء. يجب أن تكون الحجرة فارغة وسطح الشاشة جافاً قبل وضع الليف الضوئي على الشاشة. - باستخدام برنامج العرض، قم بإضاءة شاشة العرض بشكل متجانس بكل مستوى رمادي مطلوب قياسه، ثم سجل قيمة الإشعاع (350-70 نانومتر) باستخدام جهاز المطياف.
ملاحظة: يُوصى بالعمل من أعلى مستوى رمادي إلى أدناه (من الأبيض إلى الأسود)، حيث يكون المطياف أكثر عرضة للتعرض المفرط عند مستويات الإشعاع العالية. قد يتطلب الأمر إعادة معايرة وقت التكامل عند نقاط مختلفة من نطاق المستوى الرمادي لتجنب التعرض المفرط أو نقص التعرض على حد سواء. وتعتبر هذه العملية عبر جميع المستويات الرمادية مستهلكة للوقت، لذا يجب التخطيط لها وفقاً لذلك. - قم بتصحيح كل قيمة إشعاع مقاسة لطيف الامتصاص الخاص بـ *T. cystophora* أوبسين 50 نانومتر الموجود في الجزء السفلي من عدسة العين21,22.
ملاحظة: يتم إجراء تصحيح الأوبسين عن طريق ضرب التشعيع المقاس عند كل طول موجي في معامل الاستقبال المقابل من نموذج صبغة جوفاردوفسكي البصرية لطول موجي أقصى (λmax) يبلغ 50 نانومتر.21، ثم يتم الجمع عبر نطاق الطول الموجي المقاس للحصول على قيمة إشعاعية واحدة مصححة للأوبسين. ويمكن إجراء هذه العملية الحسابية باستخدام أي برنامج جداول بيانات قياسي بمجرد الحصول على بيانات الإشعاع الطيفي الخام. - احسب تباين كل مستوى رمادي باستخدام قيم الإشعاع المصححة:

أين Iو الإشعاعية المصححة بالأوبسين للخلفية البيضاء Iجرام هي الإشعاعية المصححة بالأوبسين للشريط الرمادي أو الأسود. وتتراوح قيم التباين من 0 (الشريط غير قابل للتمييز عن الخلفية) إلى 1 (أقصى تباين، شريط أسود على خلفية بيضاء). - حدد من قيم التباين المحسوبة مستويات التدرج الرمادي المقابلة لمستويات التباين المطلوبة للبروتوكول التجريبي. ثم قم بتحديث شرائح برنامج العروض التقديمية باستخدام مستويات التدرج الرمادي هذه.
ملاحظة: يمثل التباين نسبة بين قيم الإشعاع، وبالتالي فهو غير حساس للتغيرات الموحدة في إخراج المصباح المطلق عبر جميع مستويات التدرج الرمادي. ولا يلزم تكرار توصيف الإشعاع بين جلسات التسجيل، شريطة أن يظل التكوين البصري دون تغيير. ومع ذلك، يُنصح المستخدمون بالتحقق من استقرار الإشعاع في حال ملاحظة تغيرات غير متوقعة في الاستجابة للمثير عبر الجلسات.
- أفرغ غرفة التسجيل وتأكد من أن سطح شاشة العرض جاف. ضع ليفة المطياف مباشرة على سطح شاشة العرض وبشكل عمودي عليه.
<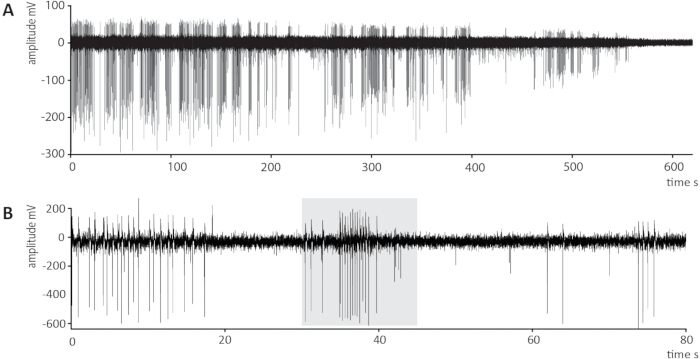
الشكل 5تسجيلات خارج خلوية تمثيلية لإشارات منظم ضربات السباحة من الروپاليوم (rhopalium) المعزول لـ Tripedalia cystophora. (Aمثال على الفقدان التدريجي لختم القطب الكهربائي خلال جلسة تسجيل ممتدة. يبدأ سعة إشارة منظم ضربات القلب في الانخفاض عند حوالي 20-250 ثانية، مما يعكس تدهور التلامس الكهربائي بين طرف القطب وعصب السويقة البشرية، وتُفقد الإشارة تماماً عند حوالي 580-60 ثانية. تنخفض كل من سعة الإشارة وضوضاء الخلفية بشكل متوازٍ، وهو ما يمثل السمة المميزة لفقدان الختم.Bتسجيل نموذجي لاستجابة تجنب العوائق المستحثة بصرياً فوق DTT. تشير المنطقة المظللة باللون الرمادي إلى نافذة التحفيز، المحددة بواسطة إشارة Arduino TTL، والتي يتم خلالها تقديم محفز عالي التباين (جـ تم تحريك عائق عبارة عن شريط عمودي (= 0.80) عبر كامل عرض المجال البصري للعدسة السفلية. يزداد تردد إشارة منظم ضربات القلب (pacemaker signal) بشكل ملحوظ خلال نافذة التحفيز، بما يتفق مع استجابة تجنب العوائق المستثارة بصرياً، ثم يعود نحو التردد الأساسي بعد انتهاء التحفيز. ومن المتوقع حدوث إشارات تلقائية لمنظم ضربات القلب خارج نافذة التحفيز، وهذه لا تشكل استجابات مستثارة بصرياً. يرجى ملاحظة أن الاختلاف في مقياس المحور الصادي (y-axis) بين اللوحات يعكس جودة التسجيل المختلفة الموضحة، ولا يعني وجود اختلاف في قوة الإشارة؛ ففي الفيزيولوجيا الكهربائية خارج الخلوية، تعتمد سعة الإشارة على جودة إحكام القطب الكهربائي وليس على مقدار الاستجابة الفيزيولوجية. جميع القيم هي قيم ما بعد التضخيم (×10). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
5. عزل الـ Rhopalium ونقله
ملاحظة: يتم تنفيذ هذا الإجراء في كل مرة تكون فيها هناك حاجة إلى rhopalium: مرة واحدة باستخدام rhopalium تضحي من أجل المعايرة البيولوجية في القسم 4، وبعد ذلك لكل rhopalium تجريبي مستخدم في القسم 6. وفي كل مناسبة، يجب تجميع جميع الأجهزة بالكامل والتحقق من سلامتها قبل التعامل مع الحيوان. يتم تحديد عدد الـ rhopalia التجريبية بناءً على التصميم التجريبي.
- باستخدام ماصة نقل بلاستيكية مخصصة للاستخدام مرة واحدة مع قص الطرف للحصول على فتحة يبلغ قطرها 8 mm تقريبًا، انقل حيوانًا واحدًا من خزان الاستزراع إلى طبق بتري بقطر 35 mm يحتوي على مياه بحر مصفاة بمرشح 0.20 µm من خزان الاستزراع.
- قم بإزالة مياه البحر الزائدة حتى يستوي الحيوان على الطبق ويصبح غير متحرك، بشرط عدم جفافه.
- باستخدام مقص دقيق (مقص فاناس، شفرة 0.025 mm × 0.015 mm)، اقطع الساق التي تربط الـ rhopalium بالمظلة عند حوالي ثلثي طول الساق مقاسة من نقطة اتصال الـ rhopalium (أي بعيدًا عن الـ rhopalium). فور القطع، أعد ملء طبق بتري بمياه بحر مصفاة بمرشح 0.20 µm من خزان الاستزراع.
تنبيه: مقصات فاناس حادة للغاية. تعامل معها بحذر أثناء التشريح لتجنب الإصابة.
ملاحظة: قد ينكمش الـ rhopalium داخل تجويف الـ rhopalium بعد القطع. إن إعادة ملء طبق بتري بمياه البحر المصفاة سيؤدي، في معظم الحالات، إلى إخراج الـ rhopalium. وإذا لم يحدث ذلك، استخدم ماصة باستور لشطفه بلطف للخارج.
باستخدام ماصة باستور (150 mm)، انقل الـ rhopalium المعزول إلى غرفة تسجيل الفيزيولوجيا الكهربائية الموضوعة على منصة المجهر. (هام جدًا) تأكد من بقاء الـ rhopalium مغمورًا في مياه البحر في جميع الأوقات أثناء وبعد النقل؛ حيث إن التعرض للهواء سيؤدي إلى تلف العينة بشكل غير قابل للإصلاح. - باستخدام ماصة نقل، أعِد الحيوان إلى خزان الاستزراع.
ملاحظة: لا يؤدي فقدان rhopalium واحد إلى إضعاف سلوك قنديل البحر الصندوقي الطبيعي بشكل كبير؛ حيث تستمر الحيوانات التي تحتفظ بـ rhopalium واحد فقط في إظهار سلوكيات التغذية والتفاعل مع حزم الضوء الطبيعية. بالإضافة إلى ذلك، تتجدد الـ rhopalia لتستعيد وظائفها الكاملة، بما في ذلك استعادة إشارات منظم ضربات القلب واستجابات المستقبلات الضوئية الطبيعية، في غضون أسبوعين من الإزالة23. يمكن استخدام الحيوان مرة أخرى في جلسات لاحقة حتى لا يتبقى أي rhopalia. وبمجرد إزالة جميع الـ rhopalia الأربعة، لن يعود الحيوان قادرًا على توليد إشارات منظم ضربات السباحة أو انقباضات المظلة، ويتم التخلص منه بطريقة رحيمة عبر تصريف حوض المختبر القياسي، بما يتوافق مع التخلص من أنسجة الـ rhopalium (الخطوة 6.2.5).
6. التسجيل
- تحديد موضع الروباليوم وتثبيت القطب الكهربائي
- املأ قطب التسجيل الشافط بسحب مياه البحر مباشرة من غرفة التسجيل إلى داخل الأنبوب الشعري حتى يصل المحلول الداخلي إلى منتصف السلك الفضي. املأ الماصة الدقيقة للتثبيت بكمية كافية من مياه البحر من غرفة التسجيل لتمكين الالتصاق بالبلورة عن طريق الشفط.
- قم بتركيب الماصة الدقيقة للتثبيت (holding micropipette) في جهاز التلاعب الدقيق (micromanipulator). ثم ثبّت طرف الماصة الدقيقة للتثبيت ببلورة كبريتات الكالسيوم (CaSO₄) الموجودة عند الطرف القاصي من الروپاليوم (rhopalium)، وذلك عن طريق تطبيق شفط خفيف باستخدام محقنة Luer-lock متصلة. توفر البلورة نقطة تثبيت ميكانيكية قوية دون إتلاف النسيج العصبي.
- باستخدام الماصة الدقيقة للتثبيت، ضع الروباليوم على حافة غطاء الشريحة في مواجهة شاشة العرض (الشكل 1D).
ملاحظة: (هام جداً) يجب قياس وتسجيل المسافة بين عين العدسة السفلية وشاشة العرض، حيث إنها مطلوبة لحساب الزاوية الظاهرية (زاوية القبول) لخصائص الصورة المعروضة عند عين العدسة السفلية باستخدام:
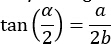
حيث تمثل α الزاوية البصرية، و a عرض ميزة الصورة، و b المسافة من العين في العدسة السفلية إلى الشاشة. وعند مسافة عمل تبلغ 2 مم، فإن صورة مسقطة بأبعاد 16 مم × 12 مم (العرض × الارتفاع) تشغل زاوية مقدارها تقريباً 150° أفقياً و 120° عمودية الـ 170° المجال البصري الدائري للعدسة السفلية للعين. يجب الحفاظ على مسافة عمل ثابتة في جميع التسجيلات، حيث إن أي انحراف يؤدي إلى إبطال الحسابات الزاوية للمنبهات المعروضة ويمنع إجراء مقارنة مباشرة بين التسجيلات. - أثناء الحفاظ على موضع الـ rhopalium باستخدام الماصة الدقيقة المثبتة، قم بتقديم قطب التسجيل نحو السطح المقطوع للساق باستخدام مناور دقيق ثانٍ.
ملاحظة: يمتد عصب الساق البشروي طولياً على كامل طول الساق، من نقطة اتصال الروپالية (rhopalium) وصولاً إلى العصب الحلقي.15وعلى السطح المقطوع، تظهر النهايات العصبية للعصب الساقي البشروي المتشعب وتصبح متاحة للتلامس مع القطب الكهربائي على السطح الفموي للساق — الجانب المواجه للعيون العدسية (الشكل 2ب). - قم بتطبيق شفط خفيف عبر سرنجة ذات قفل لوير (Luer-lock) حتى يتم تثبيت الإشارة.
ملاحظة: لا يمكن دائمًا تمييز النهايات العصبية بصريًا على السطح المقطوع. ضع طرف القطب الكهربائي فوق المنطقة التي يُتوقع وجود عصب السويقة البشرية فيها استنادًا إلى المعالم التشريحية، ثم طبق شفطًا لطيفًا. ويُستدل على التثبيت الكافي للقطب الكهربائي بظهور إشارات منظم ضربات قلب كبيرة وواضحة بدقة ذات شكل موجي ثابت عند التردد المتوقع الذي يتراوح بين 0.5 و1 هرتز (الشكل 5يتم التمييز بين إشارات منظم ضربات القلب والإشارات الشبيهة بجهد الفعل بناءً على مدة شكل الموجة ومورفولوجيتها (الشكل 2ج,د)13,20,24يُعد ظهور إشارات منظم ضربات مستقرة المعيار الحاسم للتأكد من الموضع الصحيح للقطب الكهربائي، وليس التأكيد البصري على ملامسة العصب. وفي حال عدم الحصول على إشارة، يجب تحرير الشفط، وإعادة وضع طرف القطب الكهربائي قليلاً على السطح المقطوع، ثم إعادة التطبيق. ومن شأن الشفط المفرط أن يؤدي إلى خطر انسداد الطرف ببقايا الأنسجة أو إلحاق ضرر ميكانيكي بنهاية العصب. كما يُعد الفقدان التدريجي لسعة الإشارة وظهور ضوضاء في الخلفية أثناء التسجيل مؤشراً على فقدان إحكام سد القطب الكهربائي.الشكل 5A). - اترك التحضير ليتكيف لمدة لا تقل عن 10 دقائق بعد تثبيت القطب الكهربائي وقبل البدء في التسجيلات. وخلال هذه الفترة، حافظ على إضاءة شاشة العرض بالخلفية البيضاء مع وضع الشريط الرمادي ثابتاً في أحد جانبي المجال البصري، خارج المركز.
ملاحظة: قبل البدء في عملية التكيف، يجب التأكد من استجابة التحضير عن طريق تقديم محفز واحد بأقصى تباين (c ≈ 1.0)؛ وتُستبعد الـ rhopalia التي لا تستجيب من مجموعة البيانات. وتسمح فترة التكيف باستقرار التحضير بعد الاضطراب الميكانيكي الناتج عن تثبيت القطب الكهربائي. كما يضمن الحفاظ على الشاشة البيضاء مع شريط ثابت تكيف المستقبلات الضوئية مع الظروف المرجعية التي ستسود أثناء التحفيز البصري، وضمان استقرار التردد المرجعي الأولي لناظم الخطى قبل تقديم المحفز الأول. ويمثل ذلك ميزة عملية إضافية لاستخدام برامج العرض في التحكم في المحفزات؛ حيث يكون محتوى الشاشة أثناء التكيف وبين التسجيلات مرئياً بشكل مباشر وقابلاً للتحكم الكامل دون الحاجة إلى برمجة إضافية. - بمجرد استقرار إشارة منظم ضربات القلب، قم بتحسين إعدادات مرشح تمرير النطاق في المضخم خارج الخلوي لرفع نسبة الإشارة إلى الضوضاء إلى الحد الأقصى والحفاظ على سعة الإشارة وشكل موجتها، مع مراقبة التأثير على شاشة راسم الإشارات. استخدم الإعدادات الأولية التالية: مرشح تمرير عالي 1 هرتز ومرشح تمرير منخفض 50 هرتز؛ وقم بتفعيل مرشح الثلمة 50/60 هرتز (الملحق المدمج EXT-10-2F). ثم أجْرِ التعديلات اللازمة بناءً على الإشارة المرصودة.
ملاحظة: إن رفع حد القطع للمرشح عالي التمرير فوق 1 هرتز سيؤدي تدريجياً إلى تخميد المكونات منخفضة التردد لإشارة جهاز تنظيم ضربات القلب، مما يقلل من سعتها وقد يؤثر سلباً على اكتشاف الإشارة. تبلغ سعة الإشارة المستهدفة بعد التضخيم لإشارات جهاز تنظيم ضربات القلب النظيفة والسهلة التحديد ما بين 40 إلى 60 ميلي فولت، وبحد أقصى يصل إلى 1 فولت تقريباً.
- جمع البيانات
- قم بتهيئة الـ VI (الموفر كمواد تكميلية، الملف التكميلي 3) للحصول على القنوات التالية في آن واحد عبر نظام الحصول على البيانات (DAQ) بمعدل أخذ عينات يبلغ 1 كيلو هرتز:
القناة 1: إشارة فيزيولوجيا كهربائية (إشارة منظم ضربات القلب بعد تضخيمها وترشيحها من EXT-10-2F)
القناة 2: مخرج TTL تماثلي تم توليده بواسطة LabVIEW إلى فأرة TTL)
القناة 3: الطابع الزمني التماثلي لـ TTL الخاص بـ Arduino Uno (يسجل نافذة التحفيز الموثقة — حيث يتم تحديد بداية النافذة عند تحول إشارة TTL إلى المستوى العالي، وتحديد نهايتها عند عودة إشارة TTL إلى المستوى المنخفض — وفقاً لما يرصده الثنائي الضوئي الذي يراقب مربع المؤشر الأبيض والأسود على شاشة الكمبيوتر).
ملاحظة: تسجل القناة 2 وقت تقديم التحفيز المقصود، بينما تسجل القناة 3 نافذة التحفيز الفعلية التي تم التحقق منها. يجب استخدام القناة 3 كسجل نهائي لتوقيت التحفيز في جميع التحليلات. - حدد مدة التسجيل وفقاً للبروتوكول التجريبي. بالنسبة لتسلسل عرض المثيرات القياسي الذي يتكون من خط أساس قبل التنبيه لمدة 30 ثانية، وتحفيز بصري لمدة 15 ثانية تقريباً، وفترة ما بعد التنبيه لمدة 35 ثانية، اضبط إجمالي مدة التسجيل على 80 ثانية.
ملاحظة: يستخدم هذا البروتوكول عادةً 10 مكررات بيولوجية (rhopalia)، ويُفضل الحصول عليها من 10 حيوانات مختلفة، لتقييم قوة الاستجابة، وذلك بما يتوافق مع دراسة Bielecki et al. (2023).14في عملية تحضير واحدة، يتلقى الروباليوم (rhopalium) المعزول نفسه بروتوكول التحفيز البصري كاملاً، والذي يُقدّم بالتسلسل من أدنى تباين إلى أعلاه؛ ويمنع هذا الترتيب الحيوان من التعود على غياب العواقب المنفرة عند التباين العالي، وهو ما قد يقلل من الاستجابة للمنبهات ذات التباين المنخفض التي تُقدّم لاحقاً. تبدأ التسجيلات المتتالية على فترات زمنية ثابتة مدتها دقيقتان، مما ينتج عنه فاصل زمني قدره 105 ثوانٍ بين نهاية فترة تحفيز وبداية الفترة التالية (وهي مدة كافية لعودة تردد منظم ضربات القلب إلى المستوى الأساسي قبل التحفيز التالي). لا يتم إجراء مكررات تقنية؛ حيث يتلقى كل روباليوم (rhopalium) عرضاً واحداً لكل مستوى تباين ضمن تسلسل التحفيز الخاص به. - إن أداة LabVIEW VI (الموفرة كمواد تكميلية، الملف التكميلي 3يُصدر ( ) تلقائيًا نبضة TTL من جهاز استحواذ البيانات (DAQ) إلى فأرة الـ TTL عند النقطة الزمنية المناسبة ضمن تسلسل التسجيل، مما يؤدي إلى تحريك الشريحة وبدء ظهور المحفز البصري. احفظ البيانات المكتسبة في ملف بصيغة .txt مفصولة بعلامات جدولة. عند استخدام واجهة الجهاز الافتراضية (VI) المرفقة، يتم ترميز البيانات الوصفية للتسجيل يدويًا في اسم الملف عند الحفظ.
ملاحظة: يُنصح المستخدمون بوضع اصطلاح موحد لتسمية الملفات قبل البدء في التسجيلات. مُعرِّف التحضير هو رمز فريد (على سبيل المثال، رقم الحيوان أو رقم الجلسة) يسمح بتتبع تسجيل معين وصولاً إلى الروباليوم (rhopalium) وجلسة التجربة المحددة التي نشأ منها. ويُترك مخطط التسمية الدقيق لتفضيل الباحث، شريطة أن يكون نظامياً ويسمح بتتبع أي تسجيل بشكل لا لبس فيه إلى التحضير المقابل له؛ فعلى سبيل المثال، قد يجمع اسم الملف بين تاريخ ووقت التسجيل مع معلمات التحفيز ذات الصلة (مثل مستوى التباين، وأبعاد الشريط، والسرعة). - بعد الانتهاء من جميع التسجيلات الخاصة بجهاز استشعار (rhopalium) معين، تخلص من نسيج جهاز الاستشعار عبر تصريف الحوض المختبري القياسي.
ملاحظة: يُنصح المستخدمون بوضع اصطلاح ثابت لتسمية الملفات قبل البدء في التسجيلات. ويكفي استخدام اسم ملف منهجي يتضمن التاريخ، ومعرف التحضير، وحالة التحفيز لإجراء التحليلات اللاحقة. يُفضل استخدام برمجيات العروض التقديمية على المثيرات البصرية المُولدة بواسطة برنامج LabVIEW لسببين عمليين: أولاً، تضمن هذه البرمجيات أن تكون الصورة المسقطة على عدسة العين السفلية بين التسجيلات معروفة ومتحكماً بها في جميع الأوقات، مما يمنع التحفيز البصري غير المقصود الناتج عن واجهات البرمجيات أو شاشات النظام؛ وثانياً، تحد هذه البرمجيات من مخاطر تعتيم الشاشة بين جلسات التسجيل، وهو ما قد يؤدي إلى استجابة "إطفاء الضوء" (light-OFF) في المستقبلات الضوئية، ويتسبب في ظهور نشاط ناظم خطى زائف في فترة الخط الأساس الموالية. سيتفاوت الحجم الزاوي والسرعة المدركان للشريط بشكل غير خطي عبر المجال البصري بسبب هندسة عدسة العين. ولم يتم تصحيح هذا اللاخطية لسببين: أولاً، لأن الحيوانات التي تسبح بحرية لا تقترب من العوائق بسرعة أو اتجاه ثابتين، مما يجعل التصحيح الزاوي محدود الأهمية من الناحية الطبيعية؛ وثانياً، لأن التصحيح الخاص بالحجم الزاوي سيتطلب تغييرات في نصوع الشاشة الإجمالي، وهو ما من شأنه أن يحفز استجابة التشغيل/الإيقاف الضوئية (light ON/OFF response) المشاركة في اكتشاف أعمدة الضوء في غابات المانغروف.
- قم بتهيئة الـ VI (الموفر كمواد تكميلية، الملف التكميلي 3) للحصول على القنوات التالية في آن واحد عبر نظام الحصول على البيانات (DAQ) بمعدل أخذ عينات يبلغ 1 كيلو هرتز:
7. تحليل البيانات
- تمييز إشارات منظم ضربات السباحة في برنامج Igor Pro
ملاحظة: يتم تمييز إشارات منظم ضربات السباحة عن الإشارات الشبيهة بجهد الفعل في تتبع الفيزيولوجيا الكهربائية الخام قبل تحليل التردد. يمكن أن يحدث نوعا الإشارات في وقت واحد أثناء التسجيل، ويجب التمييز بينهما قبل استخراج بيانات توقيت منظم الضربات. تتوفر أمثلة تمثيلية لكلا نوعي الإشارات وخصائص شكل الموجة المميزة لهما في الشكل 2C،D.- استورد ملف البيانات بصيغة .txt إلى برنامج Igor Pro (الإصدار 6.37 أو أحدث) باستخدام الملحق Neuromatic (الإصدار 2.0).
- ميز إشارات منظم ضربات السباحة عن الإشارات الشبيهة بجهد الفعل بناءً على مدة الإشارة ومورفولوجيا شكل الموجة.
ملاحظة: تتميز إشارات منظم ضربات السباحة بمدة نموذجية تبلغ حوالي 45 ms ومورفولوجيا شكل موجة مركبة تعكس النشاط المجمع لعدة عصبونات منظمة للضربات. أما الإشارات الشبيهة بجهد الفعل فمدتها أقصر، حوالي 10 ms، ولها شكل موجة أحادي وأكثر حدة. لا يعد سعة الإشارة وحدها معيار تمييز موثوقاً، حيث يمكن أن يصل نوعا الإشارات إلى سعات متقاربة24 (الشكل 2C،D). يتوفر شكل تمثيلي يوضح خصائص شكل الموجة المميزة لإشارات منظم ضربات السباحة والإشارات الشبيهة بجهد الفعل (الشكل 2C،D). يُنصح المستخدمون بتعريف أنفسهم على كلا نوعي الإشارات قبل التحليل، لأن الخطأ في التحديد سيؤدي إلى ظهور أخطاء في تقدير تردد منظم الضربات. تكون خصائص شكل الموجة ثابتة ضمن تحضير معين ولكنها قد تختلف نوعاً ما بين التحضيرات؛ لذا يجب تقييم معايير التمييز لكل تحضير على حدة، مع استخدام خصائص شكل الموجة الموصوفة أعلاه كإرشادات عامة بدلاً من عتبات عالمية ثابتة. بالنسبة لأشكال الموجات الغامضة أو المتوسطة التي لا يمكن تصنيفها بثقة، يتم حل الغموض في الاتجاه المعاكس للنتيجة المتوقعة أو المفترضة — على سبيل المثال، استبعد حدثاً غامضاً إذا كان ارتفاع عدد الإشارات سيدعم الفرضية التي يتم اختبارها، أو ضمه إذا كان انخفاض العدد سيدعمها — لتجنب تضخيم القوة الظاهرية للنتيجة. - استخرج الطابع الزمني لكل إشارة محددة لمنظم ضربات السباحة للحصول على سلسلة زمنية لأحداث منظم الضربات لكل تسجيل، وصدر هذه الطوابع الزمنية (على سبيل المثال، إلى جدول بيانات أو ملف .csv) لإجراء التحليل الإحصائي اللاحق.
- تحليل التردد
- احسب تردد إشارة منظم الضربات باعتباره مقلوب الفاصل الزمني بين الإشارات عبر التسجيل.
- قيم تأثير المحفز البصري من خلال مقارنة تردد منظم الضربات خلال فترة خط الأساس ما قبل التحفيز، وفترة التحفيز، وفترة ما بعد التحفيز، باستخدام الطوابع الزمنية لإشارة منظم الضربات المصححة بناءً على التأخير بين أمر TTL المسجل في LabVIEW (القناة 2) وبداية التحفيز التي تم التحقق منها بواسطة Arduino (القناة 3).
ملاحظة: تستجيب العين ذات العدسة السفلية للمحفز بناءً على توقيت TTL الذي تم التحقق منه، وليس الأمر المسجل برمجياً، لذا يتم تصدير وقت البداية المتحقق منه لكل تسجيل جنباً إلى جنب مع الطوابع الزمنية الخام لمنظم الضربات وTTL إلى جدول بيانات (الجدول التكميلي 1) ويستخدم مباشرة بواسطة نص تحليل SAS لتصنيف كل إشارة منظم ضربات ضمن نافذة ما قبل التحفيز، أو التحفيز، أو ما بعد التحفيز (الشكل 6)؛ ولا يتم تعديل أي قيم للطوابع الزمنية في مرحلة جدول البيانات. خلال ظروف خط الأساس غير المضطربة، يتراوح تردد إشارة منظم الضربات بين 0.5–1 Hz. وتتميز استجابات تجنب العوائق المستثارة بصرياً فوق DTT بزيادة في تردد منظم الضربات إلى 2–3 Hz. الحد الأقصى الفيزيولوجي هو حوالي 4 Hz، وهو ما يتوافق مع حد أدنى للفاصل الزمني بين الإشارات يبلغ 250–280 ms25. نظراً لأن تردد منظم الضربات عند خط الأساس يختلف بين التحضيرات، يتم توحيد قيم التردد لكل تسجيل بالنسبة لمتوسط التردد الخاص بذلك التسجيل، والذي يتم حسابه من فترتي ما قبل التحفيز وما بعد التحفيز (باستثناء فترة التحفيز نفسها). يسمح هذا التوحيد بمقارنة مقدار الاستجابة عبر التحضيرات بشكل مستقل عن الاختلافات في معدل منظم الضربات عند خط الأساس. تم وصف الإجراءات الإحصائية الكاملة لتقييم دلالة الاستجابة، بما في ذلك النموذج غير الخطي المستخدم لمقارنة فترات خط الأساس والتحفيز وما بعد التحفيز، في دراسة Bielecki et al. (2023)14؛ وكود تحليل SAS المقابل متاح على doi: 10.17632/csgymw8kjk.1. يتوفر سير عمل تحلي تمثيلي، بدءاً من الإشارة الخام مروراً بالتمييز، وحساب التردد، والتوحيد وصولاً إلى مقياس الاستجابة النهائي، في الشكل 7.
- قيم تأثير المحفز البصري من خلال مقارنة تردد منظم الضربات خلال فترة خط الأساس ما قبل التحفيز، وفترة التحفيز، وفترة ما بعد التحفيز، باستخدام الطوابع الزمنية لإشارة منظم الضربات المصححة بناءً على التأخير بين أمر TTL المسجل في LabVIEW (القناة 2) وبداية التحفيز التي تم التحقق منها بواسطة Arduino (القناة 3).
- احسب تردد إشارة منظم الضربات باعتباره مقلوب الفاصل الزمني بين الإشارات عبر التسجيل.
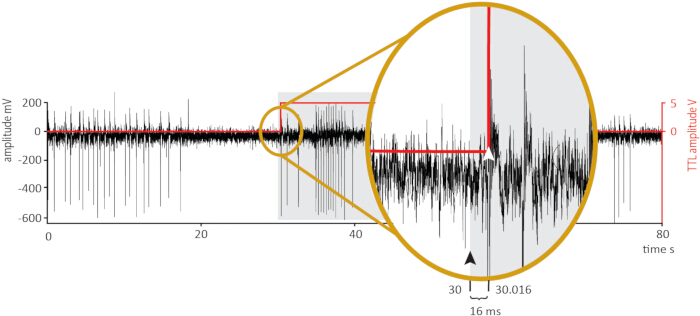
الشكل 6عرض توضيحي نموذجي لتصحيح الطابع الزمني لمنظم ضربات القلب لضمان توقيت متحقق منه بواسطة المحفز. تسجيل نموذجي يوضح التأخير الزمني بين أمر TTL المسجل بواسطة VI وبداية التحفيز التي تم التحقق منها عبر Arduino، والتي جرى التحقق منها بشكل فردي لكل تسجيل عبر سلسلة توقيت Arduino/الديود الضوئي وتصديرها إلى جدول بيانات (الجدول التكميلي 1) للاستخدام المباشر بواسطة نص تحليل SAS في تصنيف الطابع الزمني لكل إشارة من إشارات منظم ضربات القلب إلى نافذة ما قبل التحفيز، أو نافذة التحفيز، أو نافذة ما بعد التحفيز. الخط الأسود (المحور الصادي الأيسر): الإشارة الفيزيولوجية الكهربائية (mV). الخط الأحمر (المحور الصادي الأيمن): سعة TTL بـ (V). تشير المنطقة المظللة باللون الرمادي إلى نافذة التحفيز الاسمية وفقاً للطابع الزمني لأمر TTL المسجل بواسطة البرنامج. الشكل المدرج: عرض مكبّر لبداية TTL. يشير رأس السهم الأسود إلى وقت إرسال TTL المسجل بواسطة LabVIEW (t = 30.0 ثانية، القناة 2)؛ بينما يشير رأس السهم الأبيض إلى بداية التحفيز التي تم التحقق منها والتي رُصدت عبر سلسلة Arduino/photodiode (t = 30.016 ثانية، القناة 3). الفاصل الزمني البالغ 16 مللي ثانية الموضح هو مثال تمثيلي ضمن الـ <تَمَّ تسجيل نطاق 20 ملي ثانية لإطلاق إشارة TTL المؤتمتة للفأر (النتائج). وبما أن هذا التأخير ثابت ضمن تسجيل معين، فإن انتقال الإزاحة المقابل لم يتم توضيحه بشكل مستقل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
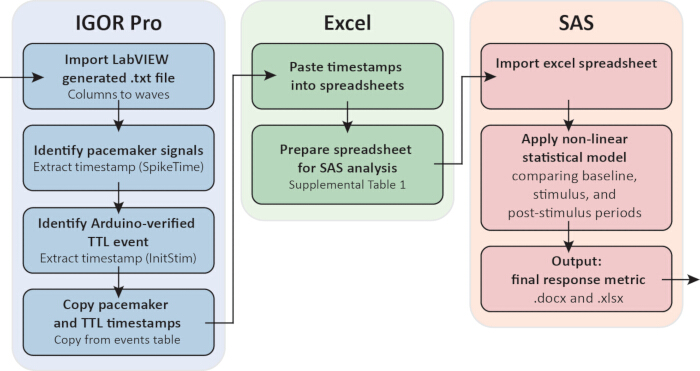
الشكل 7سير عمل تحلي نموذجي، بدءاً من التسجيل الخام وصولاً إلى مقياس الاستجابة النهائي. يتم استخراج إشارة منظم ضربات القلب والطوابع الزمنية لتقنية TTL من جدول أحداث Igor Pro/Neuromatic: حيث يتم تحديد أحداث إشارة منظم ضربات القلب بناءً على المدة ومورفولوجيا شكل الموجة (الخطوة 7.1.2)، ويتم استخراج بداية التحفيز التي تم التحقق منها بواسطة Arduino (InitStim، القناة 3) لكل تسجيل كطابع زمني مطلق، وليس كتأخير محسوب. تُنسخ هذه الطوابع الزمنية إلى جدول بيانات (الجدول التكميلي 1)، والتي يتم تحضيرها لتحليل SAS عن طريق حساب الفاصل الزمني بين النبضات (Intval) والطابع الزمني لنقطة المنتصف (MidTime) لكل حدث من أحداث إشارة منظم ضربات القلب. يقوم برنامج SAS باستيراد ورقة البيانات المُعدة وتطبيق نموذج إحصائي غير خطي (Bielecki et al., 202314مقارنة تردد منظم الخطى عبر فترات ما قبل التحفيز، وأثناء التحفيز، وما بعد التحفيز، والمصنفة بالنسبة لبداية التحفيز المتحقق منها لكل تسجيل، لاستخراج مقياس الاستجابة النهائي (ملخص بصيغة .docx، وجداول بيانات بصيغة .xlsx). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
النتائج
جودة الإشارة ونشاط منظم ضربات القلب التلقائي
بعد التثبيت الناجح للقطب الكهربائي على عصب الساق البشروي المقطوع، يجب أن تظهر إشارات منظم ضربات القلب التلقائية فوراً على راسم الإشارات (oscilloscope). يتميز التسجيل عالي الجودة بإشارات منظم ضربات قلب كبيرة وواضحة بدقة، يتراوح سعة جهدها بعد التضخيم بين 40–600 mV، وتحدث بتردد تلقائي مستقر يتراوح بين 0.5–1 Hz، مقابل خط أساس منخفض الضوضاء (انحراف ذروة يبلغ حوالي 10–15 mV على كلا جانبي الصفر، وهو ما يتوافق مع نسبة إشارة إلى ضوضاء تبلغ حوالي 27–40:1 ضمن نطاق السعة المستهدف) (الشكل 5B). يمكن تحليل التسجيلات التي تصل سعة إشاراتها إلى 10 mV، ولكنها تزيد بشكل كبير من وقت تمييز الإشارة في برنامج Igor Pro ولا يُنصح بها، خاصة للمشغلين غير المتمرسين. يميز شكل الموجة المركب لإشارة منظم ضربات القلب، والذي يعكس النشاط المجموع لعدة عصبونات trmOC، هذه الإشارة عن الإشارات القصيرة والأكثر حدة الشبيهة بجهد الفعل التي قد تظهر أيضاً في التسجيل24 (الشكل 2C،D). وكما هو موضح في الخطوة 7.1، يجب التمييز بين هذين النوعين من الإشارات قبل التحليل بناءً على مدة الإشارة (~45 ms لإشارات منظم ضربات القلب مقابل ~10 ms للإشارات الشبيهة بجهد الفعل) وشكل الموجة. لا تُعد السعة وحدها معيار تمييز موثوقاً. وقد تم إجراء تمييز الإشارات في هذا البروتوكول بواسطة مشغل واحد خبير؛ ولذلك لم يتم حساب إحصاءات الموثوقية الرسمية بين المقيمين (راجع المناقشة، المحددات).
استجابة منظم ضربات القلب المستحثة بصرياً
في التحضير السليم والاستجابي، يؤدي تقديم محفز على شكل شريط عمودي متحرك فوق الـ DTT إلى العين ذات العدسة السفلية إلى استجابة ناظم خطى (pacemaker response) واضحة ومزامنة زمنياً. يزداد تردد إشارة ناظم الخطى إلى 2–3 Hz، بالتزامن مع مرور الحافة الأمامية للعائق عبر مركز المجال البصري، ثم يعود نحو تردد الخط الأساسي بعد توقف المحفز14 (الشكل 5B). تم التحقق من توقيت بدء المحفز باستخدام سلسلة توقيت Arduino/photodiode (الخطوة 3.3) بدلاً من الاعتماد على الطابع الزمني الذي يسجله برنامج LabVIEW. عند استخدام فأرة TTL لتشغيل برنامج العرض، يكون النطاق الذي تم التحقق منه <20 ms؛ أما عند استخدام التشغيل اليدوي (قيام المشغل بالنقر على فأرة غير معدلة بالتزامن مع البدء المطلوب)، فإن النطاق الذي تم التحقق منه هو 10–150 ms. ونظراً لأن تحليل الاستجابة يستخدم وقت البدء الذي تم التحقق منه (القناة 3) بدلاً من التشغيل الذي يبلغ عنه البرنامج (القناة 2)، فإن هذا النطاق لا يؤثر على قياس الاستجابة بغض النظر عن طريقة التشغيل. تشكل هذه الزيادة في التردد الارتباط الفيزيولوجي الكهربائي لسلوك تجنب العوائق الملاحظ في الحيوانات التي تسبح بحرية، ويؤكد وجودها كلاً من حيوية التحضير والمحاذاة البصرية الصحيحة للعين ذات العدسة السفلية مع شاشة العرض.
يتم تقييم مقدار استجابة ناظم الخطى باستخدام تردد الإشارة اللحظي، والذي يُحسب كمقلوب للفترة الفاصلة بين إشارات ناظم الخطى المتتالية. يتطلب هذا النهج وجود إشارتين متتاليتين على الأقل من ناظم الخطى لتحديد قيمة التردد، مما يوفر ضمانة ذاتية ضد الكشف الإيجابي الكاذب للاستجابة الناتج عن إشارات منفردة ومعزولة.
يحدد تباين محفز الشريط المتحرك مقدار الاستجابة المستحثة. في دراسة Bielecki et al. (2023)14، استُخدمت ثلاثة مستويات من التباين (c = 0.20, 0.40, and 0.80)، بفاصل قدره f-stop واحد بين كل مستوى. وقد اختيرت قيم التباين المحددة هذه لإبقاء المدة الإجمالية للبروتوكول ضمن نافذة التسجيل المتاحة والتي تبلغ حوالي 1 h. ويجب على الباحثين الذين يدرسون حدود حساسية التباين في العين ذات العدسة السفلية، أو خصائص استجابة بصرية محددة أخرى، اختيار مستويات تباين مناسبة لسؤالهم التجريبي بدلاً من اعتماد هذه القيم بشكل إلزامي.
التسجيلات غير المثالية وأنماط الفشل
من الناحية العملية، فإن حوالي 90% (9 من أصل 10) من التحضيرات التي تستوفي معيار حيوية التأقلم (الخطوة 6.1.6) تؤدي إلى نشاط تلقائي مستقر واستجابة بصرية مثارة قابلة للقياس؛ وتعتمد هذه النسبة بشكل كبير على خبرة المشغل. أما التحضيرات المتبقية، فعادة ما تفشل لأحد الأسباب التالية: وضع الفشل الأكثر شيوعاً هو الفقدان التدريجي لإحكام سد القطب الكهربائي أثناء جلسة التسجيل. ويظهر ذلك في شكل انخفاض تدريجي في كل من سعة إشارة منظم ضربات القلب ومستوى الضوضاء الخلفية، مما يعكس تدهور التلامس الكهربائي بين طرف القطب والنهاية العصبية (الشكل 5A). إذا لوحظ هذا النمط، فيجب تحرير الشفط وإعادة تطبيقه بعد تغيير موضع طرف القطب قليلاً على سطح الساق المقطوعة. وإذا لم تتعافَ سعة الإشارة، فيجب تقييم حيوية التحضير من خلال التحقق من وجود نشاط تلقائي لمنظم ضربات القلب. إن الغياب التام للإشارة بعد محاولات إعادة التثبيت، في تحضير تم عزله لأكثر من 1 h، يعكس على الأرجح تدهور التحضير بدلاً من فشل القطب الكهربائي، وفي هذه الحالة يجب استخدام تحضير جديد.
يتمثل نمط الفشل الثاني في غياب الاستجابة المستثارة بصرياً على الرغم من استقرار نشاط منظم ضربات القلب التلقائي. يجب أن يدفع هذا إلى إعادة تقييم التكوين البصري قبل الاستنتاج بأن التحضير غير مستجيب. وتتمثل الأسباب الأكثر شيوعاً في عدم محاذاة العدسة السفلية للعين بالنسبة لشاشة العرض، وتشبع المستقبلات الضوئية نتيجة الإشعاع المفرط. لذا، يجب تكرار إجراء المعايرة البيولوجية الموصوف في الخطوة 4.1.5، وزيادة تخميد مرشح الكثافة المحايدة إذا لزم الأمر. كما يجب التحقق من بقاء محفز الشريط المتحرك ضمن المجال البصري طوال حركته، حيث إن خروج المحفز من المجال البصري قد يثير استجابة إطفاء الضوء (light-OFF) ويؤدي إلى إدخال نشاط وهمي لمنظم ضربات القلب في التسجيل.
أما النمط الثالث — وهو وجود ضوضاء خلفية عالية تحجب إشارات منظم ضربات القلب — فيعكس في أغلب الأحيان مشكلة في التأريض أو تداخلاً من التيار الكهربائي الرئيسي. يجب التحقق من تكوين التأريض النجمي الموضح في الخطوة 3.2.1، والتأكد من تفعيل مرشح الثلمة (notch filter) بتردد 50/60 Hz.
الملف التكميلي 1: مخطط Arduino. ينفذ عملية كشف بداية المحفز استناداً إلى الثنائي الضوئي: حيث يقوم Arduino Uno بأخذ عينات من الثنائي الضوئي، ومراقبة مربع المؤشر الأبيض والأسود على شاشة العرض (الخطوة 1.4.2) بتردد 1 kHz، ثم يحول الإشارة التناظرية الخام إلى نبضة TTL رقمية نقية عبر مقارنة العتبة، ويخرج هذه النبضة كإشارة توقيت محفز تم التحقق منها (القناة 3، الخطوة 6.2.1).يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 2: ملف تحفيزي نموذجي. مثال لملف برنامج عرض (Keynote) ينفذ المحفز البصري للشريط المتحرك كرسوم متحركة لكائن مستمر واحد ومربع مؤشر التحقق من التوقيت باللونين الأبيض والأسود (الخطوة 1.4). يجب على القراء الذين يصممون تسلسلات التحفيز الخاصة بهم التأكد من بقاء العرض مستقراً لفترة تكيف كافية قبل بدء كل محفز؛ حيث تقوم حلقة تغذية راجعة من الثنائي الضوئي/Arduino (الخطوة 3.3) بالتحقق من التوقيت الحقيقي للمحفز بغض النظر عن برنامج العرض المحدد أو تصميم الشريحة المستخدم.يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 3: أداة LabVIEW الافتراضية (VI). قم بتكوين جهاز NI USB-6343 DAQ بقناتين للإدخال التماثلي — AI0 (الإشارة الفيزيولوجية الكهربائية من المضخم) و AI1 (إشارة TTL لبدء التحفيز التي تم التحقق منها بواسطة Arduino، وهي إشارة التغذية الراجعة للثنائي الضوئي) — وقناة واحدة للإخراج التماثلي، AO0، والتي ترسل نبضة TTL إلى فأرة TTL في وقت التحفيز المبرمج لتقديم شريحة برنامج العرض. يسجل ملف المخرجات بصيغة .txt الناتج ثلاثة أعمدة: الإشارة الفيزيولوجية الكهربائية (AI0)، والطابع الزمني المسجل بواسطة LabVIEW لأمر تشغيل AO0 (سجل برمجي، وليس إشارة تم الحصول عليها مرة أخرى)، وإشارة TTL التي تم التحقق منها بواسطة Arduino (AI1).يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 1: تنسيق ملف إدخال SAS. تعريفات الأعمدة ومثال عملي لجدول البيانات الذي يتم رفعه إلى برنامج SAS لإجراء التحليل الإحصائي (الخطوة 7.2.1). توضح أربع طوابع زمنية متتالية لإشارات جهاز تنظيم ضربات القلب من تسجيل تمثيلي كيفية اشتقاق الفاصل الزمني بين النبضات (Intval) والطابع الزمني لنقطة المنتصف (MidTime) المستخدمين في حساب التردد؛ ولا يحتوي الحدث الأخير المدرج على قيمة Intval/MidTime، نظرًا لعدم وجود طابع زمني لاحق لإكمال الفاصل الزمني.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تعتبر عدة خطوات في هذا البروتوكول حاسمة للحصول على تسجيلات موثوقة. وأهم هذه الخطوات هي تصنيع وتجهيز قطب الشفط. وبينما يُعد أي قطب يحسن نسبة الإشارة إلى الضجيج مقبولاً لتسجيلات منظم ضربات القلب المستحثة بصرياً القياسية، تصبح المقاومة المتصلة التي تبلغ حوالي 1 MΩ حاسمة بشكل خاص عندما يُستخدم التجهيز لتقديم محفز كهربائي غير شرطي، حيث إنها مطلوبة لحساب التيار الذي تم تقديمه14. أما لأغراض التسجيل وحدها، فإن المعيار الأساسي هو جودة الإشارة بدلاً من قيمة مقاومة محددة.
من الأهمية بمكان أيضاً إجراء المعايرة البيولوجية للنظام البصري قبل البدء في التسجيلات (الخطوة 4.1.5). ونظراً لأن مخرجات جهاز العرض، وتكوين العدسة، وانعكاس الشاشة تتفاعل معاً لتحديد الإشعاع الفعال عند العين في العدسة السفلية، فلا يمكن تحديد قيمة إشعاع قابلة للتطبيق عالمياً. وتوفر المعايرة البيولوجية (باستخدام استجابة تردد منظم ضربات القلب لمحفز ذي تباين أقصى كمعيار للمدى الديناميكي للمستقبلات الضوئية) طريقة ذاتية التحقق ومستقلة عن الأجهزة لتحديد شدة التحفيز المناسبة. يجب عدم إغفال هذه الخطوة، لأن تشبع المستقبلات الضوئية الناتج عن الإشعاع المفرط سيؤدي إلى إلغاء استجابات منظم ضربات القلب المستثارة بصرياً، وقد يُفسر ذلك خطأً على أنه تحضير غير مستجيب.
يعد الحفاظ على غمر الـ rhopalium طوال عمليتي العزل والنقل أمرًا بالغ الأهمية. فجهاز الـ rhopalial العصبي حساس للغاية للجفاف، ويمكن أن يؤدي حتى التعرض القصير للهواء إلى تلف العينة بشكل غير قابل للإصلاح. يجب تنفيذ جميع خطوات النقل في وجود مياه البحر، كما يجب ملء غرفة التسجيل بمياه خزان استزراع مياه بحر مُرشحة بمرشح 0.20 µm قبل إدخال الـ rhopalium.
وأخيراً، يتطلب وضع القطب الكهربائي على سطح الساق المقطوعة صبراً؛ حيث لا يمكن دائماً تحديد النهايات العصبية لبشرة الساق بصرياً، لذا يجب التأكد من الوضع الصحيح من خلال ظهور إشارات منظم ضربات القلب التلقائية على راسم الإشارة (oscilloscope).
السبب الأكثر شيوعاً لفشل التسجيل هو فقدان إحكام غلق القطب الكهربائي (electrode seal) أثناء الجلسة. ولتقليل هذا الخطر، يجب إكمال جميع البروتوكولات في غضون ساعة واحدة من عزل الـ rhopalium. إن حد الساعة الواحدة الموصى به هنا هو خيار عملي تحفظي، يعكس التوقع العام بأن التحضير العصبي المعزول، والمنفصل عن بقية الحيوان، لا يمكن افتراض بقائه ممثلاً بشكل كامل للوظيفة الفسيولوجية السليمة إلى أجل غير مسمى، حتى في الحالات التي يستمر فيها نشاط منظم ضربات القلب (pacemaker activity). تظل الـ rhopalia المعزولة حيوية، بمعنى قدرتها على توليد إشارات pacemaker يمكن اكتشافها، لفترة أطول بكثير من نافذة التسجيل المستخدمة في هذا البروتوكول، وتصل إلى حوالي 5 h بعد العزل؛ ومع ذلك، فإن ما إذا كانت الاستجابات المسجلة في وقت متأخر من هذه النافذة تظل ممثلة تماماً لتحضير سليم لم يتم توصيفه بشكل منهجي، لذا يتم استخدام حد 1 h كفترة عازلة تحفظية بدلاً من كونه عتبة محددة بدقة. يعد الفقدان التدريجي لإحكام غلق القطب وضعية فشل تقنية منفصلة ويمكن تحديدها بسهولة، وهي السبب الأكثر شيوعاً لفقدان الإشارة ضمن جلسة تسجيل واحدة (انظر أدناه)، ولكن هذا لا يستبعد مساهمة حالة التحضير في حدوث تغيرات أكثر دقة في الاستجابة بمرور الوقت. إذا حدث فقدان للإحكام أثناء التسجيل، يمكن تحرير الشفط، وإعادة وضع القطب على سطح السويقة المقطوعة، ثم إعادة تطبيق الشفط. ومع ذلك، إذا تم عزل التحضير لأكثر من ساعة واحدة، فمن المستحسن البدء بتحضير جديد بدلاً من استثمار الوقت في استكشاف أخطاء تحضير متدهور وإصلاحها.
يجب التعامل مع إعدادات المرشح كنقاط بداية بدلاً من كونها معاملات ثابتة. إن قيم مرشح تمرير النطاق المحددة في هذا البروتوكول (مرشح تمرير عالي 1 Hz، ومرشح تمرير منخفض 50 Hz، ومرشح ثلمة 50/60 Hz) هي القيم التي ترفع نسبة الإشارة إلى الضوضاء إلى الحد الأمثل في بيئة التسجيل الخاصة بالمؤلفين. وقد تحتاج المختبرات التي تعاني من مستويات مختلفة من التداخل الكهربائي، أو التي تستخدم نماذج مختلفة من المضخمات، إلى ضبط هذه الإعدادات تجريبياً من خلال أدوات التحكم في المضخم مع مراقبة الإشارة على شاشة راسم الإشارة في بداية كل جلسة.
إذا غاب نشاط منظم ضربات القلب التلقائي بعد توصيل القطب الكهربائي، فيجب تقييم العينة قبل استكشاف أخطاء القطب وإصلاحها. يُظهر الـ rhopalium المعزول والسليم إشارات تلقائية لمنظم ضربات القلب بتردد 0.5–1 Hz خلال دقائق من توصيل القطب الكهربائي. وغالباً ما يعكس غياب النشاط التلقائي تضرر العينة أثناء عملية العزل أو النقل بدلاً من فشل القطب الكهربائي. وعلى العكس من ذلك، إذا كان النشاط التلقائي موجوداً ولكن لم يتم الحصول على استجابة مستثارة بصرياً، فيجب تكرار المعايرة الضوئية قبل استنتاج أن العينة غير مستجيبة.
بالنسبة للمختبرات التي تقوم بتكييف هذا البروتوكول مع أجهزة مختلفة، يمكن استبدال سلسلة التحقق من التوقيت الخاصة بـ TTL mouse وArduino Uno الموضحة في الخطوة 3.3 بأي نظام يوفر سجلاً لنافذة التحفيز على مستوى الأجهزة ومستقل عن البرمجيات، يتم الحصول عليه بشكل متزامن مع الأثر الفيزيولوجي الكهربائي. لقد تم تطوير التنفيذ المحدد الموصوف هنا لربط بيئة الحصول على البيانات LabVIEW على جهاز كمبيوتر شخصي ببرمجيات العرض على جهاز كمبيوتر منفصل، وهو يعكس حلاً هندسياً عملياً لتحدي شائع يتعلق بالتكامل عبر المنصات المختلفة. إن المبدأ الأساسي المتمثل في أن المحفزات البرمجية وحدها غير كافية لتحليل دقيق لتوقيت الاستجابة للمحفز ينطبق بغض النظر عن منصة الأجهزة المحددة المستخدمة.
يتمثل القيد الأساسي في تحضير الروباليوم (rhopalium) المعزول في أنه يسجل من روباليوم واحد بشكل منفصل. أما في الحيوان السليم، فتكون الروباليات الأربعة متصلة عبر العصب الحلقي15، ويتم دمج مخرجاتها لإحداث سلوك سباحة منسق. ولا يمكن الوصول إلى التواصل بين الروباليات في هذا التحضير. ومع ذلك، ولغرض استقصاء معالجة المعلومات البصرية داخل جهاز عصبي روبالي واحد، فإن هذا العزل يعد نقطة قوة وليس نقطة ضعف؛ حيث يزيل التأثير المربك للمدخلات القادمة من الروباليات الأخرى، ويسمح بتحديد خصائص الاستجابة البصرية لجهاز عصبي روبالي (RNS) واحد بشكل كامل.
كما أن عزل الـ rhopalium يؤدي أيضاً إلى استبعاد السياق الحسي متعدد الأنماط الذي يتجاوز الـ rhopalium نفسه؛ والمستقبلات الكيميائية المفترضة الموصوفة تشريحياً على سطحه.17 لم يتم ربطها وظيفياً باستجابة منظم ضربات القلب (pacemaker response)، لذا يمكن تفسير الإشارة بشكل معقول على أنها قراءة للمعالجة البصرية غير متأثرة إلى حد كبير بالمدخلات غير البصرية. وثمة قيد أكثر جوهرية يتمثل في أن تسجيل عصب الساق خارج الخلوي يلتقط فقط إشارة المخرجات الحركية المتكاملة لـ trmOC. ولا يمكن تحليل المساهمات الفردية لـ subOC في المعالجة البصرية من الناحية الفيزيولوجية الكهربائية؛ إذ يتطلب ذلك دقة تحليلية مكانية. في الجسم الحي نهج التصوير. وبناءً عليه، فإن الطريقة الفيزيولوجية الكهربائية الموصوفة هنا هي مقياس للأمر الحركي المتكامل النهائي، وليست مقياساً لخطوات المعالجة الوسيطة داخل نظام العصبونات الشبكية (RNS).
يترتب على ذلك نتيجة عملية مهمة: إن بروتوكول الفيزيولوجيا الكهربائية لـ rhopalium المعزول ليس طريقة قائمة بذاتها. فمن الضروري إجراء تحليل سلوكي للحيوان كاملاً قبل تصميم تجارب rhopalium المعزول، وذلك لتحديد المنبهات البصرية التي تحفز السلوكيات التي تؤدي إلى تغيير تردد انقباض الجرس. ولا يمكن تقييم السلوكيات التي لا تحدث تغييراً في تردد إشارة منظم ضربات القلب باستخدام هذا النهج. إن القراءة الفيزيولوجية الكهربائية هي تحديداً مقياس لمخرجات المحرك السباحي، ويجب أن تستند التصاميم التجريبية إلى توصيف سلوكي مسبق لضمان أن المنبهات المختارة تشغل هذه المخرجات.
يعتمد كل من نجاح التسجيل وتصنيف الإشارات على خبرة المشغل. ينتج عن ما يقرب من 90% من التحضيرات التي تستوفي معيار حيوية التأقلم (الخطوة 6.1.6) نشاط تلقائي مستقر واستجابة مثارة بصرياً قابلة للقياس عندما يتم ذلك على يد مشغل خبير؛ ومن المتوقع أن تكون هذه النسبة أقل خلال المراحل الأولى من منحنى التعلم. تم إجراء التمييز بين الإشارات الخاصة بناظم الخطى والموجات الشبيهة بجهد الفعل (الخطوة 7.1.2) بواسطة مشغل خبير واحد في هذه الدراسة؛ ونظراً لأن اختبار الموثوقية الرسمي بين المقيمين يتطلب عدة مراقبين مستقلين، لم يكن من الممكن حساب إحصائية الاتفاق بين المقيمين. وبدلاً من ذلك، تم الحفاظ على الاتساق الداخلي من خلال مقارنة الموجات الغامضة بإشارة ذات هوية معروفة ضمن نفس التسجيل، وعادة ما تكون استجابة مثارة ذات تباين أقصى.
تعكس خيارات الأجهزة والبرمجيات في هذا البروتوكول — عدسة جهاز عرض معدلة، وفأرة TTL مخصصة، وسلسلة توقيت Arduino، وبرامج LabVIEW/Igor Pro/SAS — المعدات والخبرات المتوفرة بالفعل في مختبر المؤلفين بدلاً من كونها متطلبات أساسية للمنهجية. وقد تم تعديل عدسة جهاز العرض لأن التكوين القياسي لم يلبي متطلبات الإعداد. وتعمل فأرة TTL كجسر بين كمبيوتر التحفيز وكمبيوتر الاستحواذ: حيث يرسل برنامج LabVIEW نبضة TTL إلى الفأرة ويسجل وقت الإرسال (القناة 2)، بينما يؤدي النقر على الفأرة إلى تفعيل بناء التحفيز عبر USB. وبما أن التأخير بين هذا المحفز المسجل والتغيير الفعلي على الشاشة يكون متغيراً، فإن سلسلة مستقلة من الثنائي الضوئي/Arduino تتحقق من البداية الحقيقية للتحفيز وتعيد تغذية نبضة TTL ثانية إلى نظام DAQ (القناة 3)؛ وقد يتوفر بديل تجاري للفأرة، ولكنه غير معروف للمؤلفين. لا يتطلب أي من هذه الأجهزة مهارات تصنيع متخصصة أو تكلفة عالية، وكل ما يحتاجه أي نظام استحواذ بديل هو تلبية متطلب أخذ العينات متعدد القنوات المتزامن بتردد 1 kHz، بالإضافة إلى ما يتطلبه ذلك من خبرة في الإلكترونيات أو البرمجة. مع وجود استثناء واحد: يتطلب تخصيص مضخم تماثلي مناسب خبرة في تصميم الدوائر منخفضة الضوضاء، وهو أمر لا يُفترض توفره لدى القارئ.
*T. cystophora* يجمع بين الرقي البصري للأنظمة القابلة للتعديل وراثياً مثل دروسوفيلا وأسماك الزيبرا (zebrafish) التي تتميز بقابلية التتبع على مستوى الدائرة العصبية، كما هو الحال في الأنظمة البسيطة عددياً مثل C. elegansيتكون الجهاز العصبي الروبالي (rhopalial nervous system) من حوالي 10 عصبون، مقارنة بنحو 20,00 عصبون في الـ ذبابة الفاكهة (Drosophila) الدماغ1 و302 في المجموع الكلي C. elegans الجهاز العصبي2ومن المزايا الإضافية لهذا النظام وجود تسلسل هرمي حسي: T. cystophora يمتلك أنماطاً حسية متعددة، بما في ذلك الاستقبال الميكانيكي (المرتبط وظيفياً بالتعلم الترابطي14) والاستقبال الكيميائي المفترض (الذي تم وصفه تشريحيًا ولكن لم يتم إثباته وظيفيًا17بالإضافة إلى الرؤية. ومع ذلك، في تحضيرات الروباليوم (rhopalium) المعزولة، ثبت وظيفياً أن الرؤية هي الوحيدة التي تحفز استجابة منظم الخطى (pacemaker) التي يتم تقييمها بواسطة هذا البروتوكول، مما يسمح بتفسير الإشارة على أنها قراءة غير مشوشة نسبياً للمعالجة البصرية، دون التعقيدات التفسيرية التي تنشأ عندما تشكل حواس نشطة متعددة ومتزامنة استجابة سلوكية بشكل مشترك. ويمكن تحديد المحفزات البصرية بدقة من حيث المكان والزمان والتباين، بينما يمكن استخدام إشارة منظم الخطى كبديل كمي للمخرجات الحركية المدفوعة بصرياً، وهو أمر ذو صلة بسلوك الحيوان ككل.14.
بالإضافة إلى الفيزيولوجيا الكهربائية البصرية، تم تطبيق تحضير الـ rhopalium المعزول بنجاح في الاستقصاءات الفارماكولوجية لـ RNS من خلال اختبارات النواقل العصبية والمعدلات العصبية المضافة إلى الحمام، مما أتاح تحديد أنظمة النواقل التي تعدل مخرجات منظم الخطى24. كما أن هذا التحضير قابل للتطبيق باستخدام مناهج تصوير الكالسيوم والجهد الكهربائي. وتدعم أعمال أولية غير منشورة في مختبر المؤلفين، باستخدام مؤشر كالسيوم نافذ للخلايا، جدوى تصوير الكالسيوم في هذا التحضير؛ بينما لا يزال تصوير الجهد الكهربائي غير مختبر. ومن شأن هذه المناهج أن تختبر بشكل مباشر بنية شبكة subOC–trmOC نفسها، والتي لا تزال نموذجاً عملياً، كما ستوفر الدقة المكانية اللازمة لاستجواب نشاط subOC و trmOC بشكل مستقل أثناء التحفيز البصري، وهي قدرة لا يمكن أن يوفرها التسجيل خارج الخلوي وحده. وتجعل هذه المناهج التكاملية من الـ rhopalium المعزول لـ T. cystophora تحضيراً سهل التعامل معه للغاية لإجراء استقصاءات على مستوى الأنظمة للمعالجة البصرية والتكامل الحسي الحركي في جهاز عصبي ذي تعقيد محدد ومحدود.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
يعرب المؤلفون عن امتنانهم لـ Dan-eric Nilsson لاستخدام صورة الـ rhopalium (الشكل 1B)، وللمساعدة التقنية التي قدمها كل من Mathias Hoppe وIngo Klein وOlaf Wendt وHolger Voigt (جامعة Kiel)، وللمساعدة المقدمة من أعضاء مجموعة Sensory Biology Group (جامعة كوبنهاغن) في الحفاظ على المزارع. تم تمويل هذا العمل من قبل Deutsche Forschungsgemeinschaft (DFG, المؤسسة الألمانية للبحوث) – معرف المشروع 567357102 (J.B.)
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| طبق بتري بقطر 35 مم | Nunc | 153066 | أي طبق بتري مكافئ مناسب |
| Arduino Uno | أردوينو (Arduino) | — | يُحوّل إشارة الثنائي الضوئي (photodiode) إلى منطق مستوى ترانزستور-ترانزستور (TTL) للتحقق من توقيت التحفيز؛ بمعدل تحديث قدره 1 كيلو هرتز |
| عدسة محدبة الوجهين f = 30 مم | لينوس | G063-02-0 | استُبدلت عدسة الشركة المصنعة؛ لتركيز الصورة على جدار شاشة العرض في غرفة التسجيل |
| أنبوب شعري من زجاج البوروسيليكات، بقطر داخلي 1.16 مم × قطر خارجي 2.00 مم × 80 مم طول | المنتجات العلمية | GB20-8P | لتصنيع القطب الكهربائي بالامتصاص |
| ماصة نقل تستخدم لمرة واحدة | Sarstedt | 86.1171 | قص طرف الماصة ليكون بفتحة تبلغ ~8 مم لنقل الحيوانات |
| حامل قطب كهربائي PPH-OP-BNCPC | أجهزة ALA العلمية | PPH-OP-BNCPC | حامل من نوع BNC مزود بمنفذ شفط؛ مُورد مع سلك فضي (Ag) بقطر ~0.25 مم |
| مضخم الإشارات خارج الخلوية EXT-10-2F | NPI Electronic | — | مضخم تفاضلي مقترن بسعة كهربائية؛ مرحلة رأسية ×10، مضخم رئيسي ×١٠، إجمالي الكسب ×10؛ مرشح تمرير نطاق متكامل: مرشح تمرير عالٍ 1 هرتز، مرشح تمرير منخفض 50 هرتز؛ ملحق مرشح ثلمة 50/60 هرتز مفعل؛ مزود بذراع لمرحلة الرأس |
| غطاء شريحة مقياس كرات الدم 20 مم × 26 مم | Carl Roth | ل 189 | تستقر على حواف غطاء الشريحة بفعل الطفو السلبي؛ وهي أكثر متانة من أغطية الشرائح القياسية |
| Igor Pro 6.37 | WaveMetrics Inc. | الإصدار 6.37 | ليك أوسويغو، أوريغون، الولايات المتحدة الأمريكية؛ لتحليل إشارة جهاز تنظيم ضربات القلب |
| LabVIEW 2016 | National Instruments | إصدار 2016 | برمجيات الاستحواذ والتحكم في المحفزات؛ تم توفير فيديو توضيحي كمواد تكميلية |
| حقنة لور لوك (Luer-lock) | — | — | عام؛ أي حقنة مختبرية قياسية ذات قفل لوير (Luer-lock) مناسبة |
| Microforge MF-2 | Narishige | — | لتلميع طرف القطب الكهربائي (الخيار أ) |
| المتلاعب الدقيق MM3 | مäيرجى تزويدي بالنص المراد ترجمته.äمستخدم Wetzlar | 0-42-101-0 (يمين) / 0-42-102-0 (يسار) | محور يدوي ثلاثي الأبعاد؛ يتطلب وجود اثنين (لإمساك الماصة والقطب التسجيلي) |
| جهاز سحب الماصات الدقيقة، Flaming/Brown P-10 | Sutter Instrument | P-10 | برنامج السحب: السطر 1×1: الحرارة 535، السحب 0، السرعة 12، الزمن 200، الضغط 60، التدرج 540؛ الخطوط 2–4 × 3: الحرارة 532، السحب 0، السرعة 12، الوقت 10 |
| إضافة Neuromatic الإصدار 2.0 | — | الإصدار 2.0 | لبرنامج Igor Pro؛ تمييز إشارة منظم ضربات القلب واستخراج الطابع الزمني |
| مرشح الكثافة المحايدة | Thorlabs | NE10A | نفاذية بنسبة 10%؛ ويجب التحقق من التوهين تجريبيًا عن طريق المعايرة البيولوجية (الخطوة 4.1) |
| جهاز الحصول على البيانات NI USB-6343 DAQ | National Instruments | 781438-01 | جهاز الحصول على البيانات (DAQ) متعدد الوظائف بدقة 16 بت؛ الحصول على البيانات الفيزيولوجية الكهربائية، تقديم محفز TTL للفئران، مدخل Arduino TTL؛ معدل أخذ العينات 1 كيلو هرتز |
| جهاز عرض Optoma ML750 بتقنية DLP | أوبتوما (Optoma) | ML750 | تمت إزالة نظام العدسات الخاص بالشركة المصنعة؛ واستُبدل بعدسة محدبة مزدوجة واحدة ببعد بؤري f = 30 مم |
| راسم الإشارة (أوسيلوسكوب) DS102E | Rigol | DS102E | للمراقبة الآنية للإشارة أثناء وضع الأقطاب الكهربائية وتحسين المرشح |
| ماصة باستور 150 مم | Carl Roth | 4518 | لنقل الروباليوم (rhopalium) |
| الثنائي الضوئي BRW21 | OSRAM | BRW21 | ثنائي ضوئي من السيليكون؛ يراقب مربع المؤشر الأبيض والأسود على شاشة الكمبيوتر |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | كاري، كارولاينا الشمالية، الولايات المتحدة الأمريكية؛ التحليل الإحصائي لاستجابة جهاز تنظيم ضربات القلب؛ الكود متاح على doi: 10.17632/csgymw8kjk.1 |
| أنابيب سيليكون | Erich Eydam KG | 9205000 | لوصلة الشفط بين حامل القطب والمحقنة |
| مرشح سرنجة Filtropur S، 0.20 µm بولي إيثر سلفون | Sarstedt | 83.1826.001 | لتصفية مياه البحر من خزان الاستزراع المخصصة لغرفة التسجيل وأطباق التحضير |
| مقصات فاناس | World Precision Instruments | 500086 | 0.025 مم × شفرة بسماكة 0.015 مم؛ لقطع سويقة الروباليوم |
| WTE var 3185 | مساعد | — | جهاز التحكم في درجة حرارة الحمام المائي |
المراجع
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.