نقدم بروتوكولاً بسيطاً لإعادة تشكيل المجمعات الفائقة للتنفس الميتوكوندري الوظيفية في جسيمات شحمية بروتينية محددة جيداً من أجل التوصيف البنيوي والوظيفي المترابط.
مقالة منهجية
إعادة التشكيل الوظيفي للمعقدات الفائقة للتنفس الميتوكوندريا
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تعد الميتوكوندريا مراكز محورية في عملية التمثيل الغذائي للطاقة الحيوية والمصدر الرئيسي لـ ATP. ويحتوي الغشاء الميتوكوندري الداخلي على نظام الفسفرة التأكسدية، والذي يشتمل على معقدات سلسلة نقل الإلكترونات (CI، CII، CIII2، و (CIV) ومعقد سينثاز ATP (CV). وفي الثدييات، فإن CI و CIII2, وتشكل CIV هياكل من رتب عليا تسمى المعقدات الفائقة (SCs)، مثل المعقد الفائق SC I+III2+IV، SC I+III2، و SC III2+IV. على الرغم من أن العوامل الفسيولوجية التي تعزز تكوين المجمعات الفائقة (SCs) لا تزال غير واضحة، فقد اقتُرح أن تكوين المجمعات الفائقة قد يزيد من معدلات انتقال الإلكترونات بين المجمعات، أو يقلل من إنتاج أنواع الأكسجين التفاعلية، أو يمنع التجمع غير النوعي للبروتينات داخل الغشاء الميتوكوندري الداخلي المكتظ. وقد اعتمدت الدراسات التركيبية والوظيفية للمجمعات الفائقة التنفسية بشكل كبير على المجمعات المستخلصة باستخدام المنظفات. ورغم أن هذه الدراسات قد حسنت فهمنا لسلسلة نقل الإلكترون، إلا أن غياب طبقة غشائية ثنائية محكمة يحد من قدرتها على سبر الفوائد الوظيفية لتجميع المجمعات الفائقة. ومع ذلك، أظهرت التطورات الحديثة أنه يمكن توصيف البروتينات الغشائية تركيبياً في بيئات غشائية مُعاد تشكيلها شبيهة بالبيئة الأصلية، مما يوفر سياقاً أكثر فسيولوجية لهذه الاستقصاءات. نقدم هنا بروتوكولاً بسيطاً وسريعاً وقابلاً للتكرار لإعادة تشكيل المجمعات الفائقة التنفسية داخل الليبوزومات. وتسمح هذه الطريقة باختبار تأثيرات تركيبات الدهون المتنوعة، وتركيز البروتين، والجهد الغشائي على وظيفة المجمعات الفائقة التنفسية، مما يوفر أداة قيمة للدراسات الميكانيكية المستقبلية.
المقدمة
تعد الميتوكوندريا مركزية في عملية التنفس لدى حقيقيات النوى. ويستضيف الغشاء الميتوكوندري الداخلي (IMM) نظام الفسفرة التأكسدية، الذي يتكون من معقدات سلسلة نقل الإلكترونات (CI–CIV) وإنزيم سينثاز ATP (CV)1. يقوم المعقدان CI و CII بنقل الإلكترونات من الركائز المختزلة إلى يوبيكوينون (CoQ)، مما ينتج يوبيكوينول (CoQH2)، والذي يمرر بدوره الإلكترونات عبر CIII2 وعن طريق السيتوكروم c إلى CIV، حيث يتم اختزال الأكسجين إلى ماء. ويؤدي ضخ البروتونات بواسطة CI و CIII2 و CIV إلى إنشاء القوة الدافعة للبروتونات (PMF)، والتي يستخدمها CV لتخليق ATP من ADP والفوسفات غير العضوي (P)1.
بالإضافة إلى عملها بشكل مستقل، يمكن أن يتجمع كل من CI وCIII2 وCIV في هياكل معقدات فائقة (SC) من رتب أعلى وبنسب تراكيب محددة، مثل SC I+III2+IV (المعروف أيضاً باسم الريسبراسوم/respirasome)، وSC I+III2، وSC III2+IV2,3,4,5. ولا تزال المزايا الوظيفية لهذه التجمعات غير واضحة6. وتتراوح الفرضيات حول وظيفتها من أدوار في التجميع وتوجيه الركيزة إلى كونها نتاجاً ثانوياً لكثافة البروتين العالية في الغشاء الميتوكوندري الداخلي (IMM)3,7,8,9,10,11,12,13,14,15. وتشير الدراسات الحديثة إلى أن خصائص الغشاء، بما في ذلك الإجهاد الغشائي الناجم عن عدم التطابق الكاره للماء، والتفاعلات بين البروتينات، والتفاعلات بين البروتينات والليبيدات، تساهم في تكوين المعقدات الفائقة واستقرارها16.
اعتمدت الدراسات التركيبية والوظيفية لبروتينات الغشاء تقليدياً على المعقدات المذابة في المنظفات، والتي تؤدي إلى تعطيل البيئات الغشائية الأصلية وتحد من استقصاء العمليات التي تعتمد على جهد الغشاء وتدرجات الأيونات. وفي المقابل، تظهر التطورات الحديثة أنه يمكن توصيف بروتينات الغشاء تركيبياً في أغشية مُعاد تكوينها17,18,19 أو أغشية أصلية20,21,22,23، مما يعزز بشكل كبير قدرتنا على فحص الآليات الوظيفية لبروتينات الغشاء التي تعتمد على جهد الغشاء وتدرجات الأيونات.
يصف هذا البروتوكول طريقة بسيطة وقابلة للتكرار لإعادة تشكيل المجمعات التنفسية الميتوكوندريالية الفائقة (SCs) داخل ليبوزومات بروتينية محددة. ويوفر النظام الناتج منصة قوية لاستقصاء الأسئلة الجوهرية المتعلقة بتكوين المجمعات الفائقة التنفسية واستقرارها ووظيفتها في بيئة غشائية محكومة ومحاكية للبيئة الطبيعية. ومن خلال دمج CoQ10 والسيتوكروم c أثناء عملية إعادة التشكيل، نبين أن المجمعات الفائقة المعاد تشكيلها في الليبوزومات البروتينية تدعم استهلاك الأكسجين المدفوع بـ NADH، مما يشير إلى أن المجمعات تظل كفؤة وظيفياً داخل الطبقة الدهنية المزدوجة. كما نوضح كذلك إمكانية تصور المجمعات الفائقة بسهولة في الليبوزومات البروتينية باستخدام المجهر الإلكتروني المبرد (cryo-EM)، مما يتيح إيجاد ارتباط مباشر بين التنظيم البنيوي والنشاط البيوكيميائي.
بينما تتسم هذه الطريقة بالمتانة وسهولة التكرار، فإن نجاح عملية إعادة التشكيل يعتمد على التحسين الدقيق لتركيب الدهون، وتركيز المنظف، ونسبة البروتين إلى الدهون، والإغلاق الفعال للغشاء للحفاظ على استقرار ونشاط المعقدات الفائقة.
الهدف العام من هذه الطريقة هو تمكين التحليل البنيوي والوظيفي المتكامل للمجمعات فائقة الجزيئات (SCs) التنفسية تحت ظروف غشائية محددة. ويعالج هذا النهج القيود الرئيسية للأنظمة القائمة على المنظفات عن طريق استعادة المجمعات فائقة الجزيئات (SCs) إلى طبقة ليبيدية ثنائية محكمة يمكنها دعم تكوين جهد الغشاء والتفاعلات البروتينية-الليبيدية ذات الصلة الفسيولوجية. بالإضافة إلى ذلك، يسمح هذا النظام بالتحكم الدقيق في تكوين اللبيدات، والعوامل المساعدة، ومحتوى البروتين، مما يجعله مناسباً للاختبار المنهجي لكيفية تأثير خصائص الغشاء على استقرار ونشاط المجمعات فائقة الجزيئات (SCs). وبالمقارنة مع التحضيرات المذابة بالمنظفات أو مناهج in situ، توفر هذه الطريقة ميزة واضحة تتمثل في الجمع بين المقاييس الوظيفية، مثل استهلاك الأكسجين المدفوع بـ NADH، والتحليل البنيوي القائم على المجهر الإلكتروني المبرد (cryo-EM)، مما يتيح إيجاد ارتباطات بين البنية والوظيفة يصعب تحقيقها باستخدام الأنظمة الأخرى.
البروتوكول
عُزلت أغشية الميتوكوندريا في قلب الخنازير من أنسجة قلب تم شراؤها تجارياً من حيوانات ذُبحت للاستهلاك البشري. لم يتم استخدام حيوانات حية خصيصاً لهذا البروتوكول. وقد تبيّن أن استخدام هذه المادة معفى من الموافقة الأخلاقية الخاصة بالحيوانات لأن الأنسجة تم الحصول عليها كمنتج ثانوي من حيوانات ذُبحت للاستهلاك البشري.
1. تنقية المعقدات الفائقة الميتوكوندرية SC I+III2/SC I+III2+IV من الأغشية المغسولة للميتوكوندريا في قلب الخنازير
- قم بإذابة 40 mg (4 mL) من أغشية الميتوكوندريا المغسولة كحصص قدرها 10 mg/mL (يتم تحضير الأغشية المغسولة كما تم الإبلاغ عنه سابقاً24,25).
- خفف الأغشية في 4 mL من Buffer MX (30 mM HEPES, pH 7.7, 150 mM potassium acetate, 10% glycerol, 1 mM EDTA, 0.002% (w/v) phenylmethylsulfonyl fluoride, 0.1% (w/v) CHAPS (3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate), 1 mM potassium ferricyanide). أضف 8 mL من digitonin بتركيز 2% (w/v) في Buffer MX (160 mg digitonin في 8 mL؛ النسبة النهائية 4:1، (mg digitonin: mg total membrane protein). يكون الحجم النهائي 16 mL.
- قم بتجانس المزيج يدوياً باستخدام Dounce homogenizer (50 ضربة)، مع الحرص على عدم إدخال فقاعات. حضّن (قم بالتدوير) لمدة 1 h عند 4 °C.
- قم بطرد المزيج المتجانس مركزياً عند 16,000 × g، و4 °C لمدة 30 min. اجمع الراشح.
- ركز الراشح إلى 1 mL باستخدام مركز ترشيح طرد مركزي بحد قطع 100 kDa عند 3000 × g، و4 °C. قم بالتركيز في دورات مدتها 10 min، مع الخلط جيداً بين عمليات الطرد المركزي، حتى الوصول إلى الحجم المطلوب (تميل العينات إلى التكتل إذا لم يتم إعادة تعليقها بين دورات الطرد المركزي بسبب زيادة التركيز الموضعي للمنظف بالقرب من المرشح).
- قسّم العينة المركزة إلى أربع حصص حجم كل منها 250 µL.
- قم بموازنة عمود كروماطوغرافيا استبعاد الحجم (حجم العمود: 24 mL) باستخدام محلول كروماطوغرافيا استبعاد الحجم (SEC buffer; 30 mM HEPES pH 7.8, 150 mM potassium acetate, 1 mM EDTA, 0.005% glycocide detergent) بمقدار 48 mL (ضعفي حجم العمود).
- اضبط برنامج الكروماطوغرافيا لجمع كسور بحجم 1 mL بدءاً من حجم شطف 6 mL والاستمرار حتى حجم شطف 24 mL. احقن حصة 250 µL (من الخطوة 1.6) على راتنج كروماطوغرافيا استبعاد الحجم سعة 24 mL. استخدم العمود الذي تمت موازنته مسبقاً بمحلول كروماطوغرافيا استبعاد الحجم (من الخطوة 1.7). اجمع الكسور من جهاز جمع الكسور قبل بدء التشغيل التالي.
- كرر الخطوتين 1.7 و1.8 لبقية الحصص المركزة من الخطوة 1.6.
- قم بتشغيل 10 µL من كل كسر من عمليات SEC ممزوجة مع 5 µL من صبغة تحميل الفصل الكهربائي لهلام بولي أكريلاميد الأصلي الأزرق (BN-PAGE) على تدرج أكريلاميد 3%–12% وأجرِ مقايسة نشاط CI داخل الهلام باستخدام NADH/Nitro tetrazolium blue chloride CI26 لفحص نشاط CI في الكسور.
ملاحظة: تشطف معقدات SC التنفسية من وسط ترشيح هلام الأجارو-ز المترابط سعة 24 mL عند حجم شطف يبلغ حوالي 11.5 mL. - اجمع الكسور التي تظهر أقصى نشاط لـ CI ذو الوزن الجزيئي العالي في مقايسة نشاط CI داخل الهلام. ركز العينة كما هو موضح في الخطوة 1.5 أعلاه.
ملاحظة: يمكن تخزين معقدات SC المركزة في منظف glycoside glyco-diosgenin GDN مع 30% (v/v) glycerol بتركيز نهائي يبلغ حوالي 10 mg/mL في نتروجين سائل Liquid N2. أنتج 40 mg من معقد الميتوكوندريا المغسول 3.4 mg من البروتين الكلي بناءً على مقايسة BCA.
2. تحضير خليط الدهون
ملاحظة: تم تعديل هذه الخطوات بناءً على البروتوكولات المبلغ عنها سابقاً27,28. يعتبر الكلوروفورم مادة سامة ومتطايرة ويُشتبه في كونها مادة مسرطنة، لذا يجب التعامل معه فقط داخل خزانة استخلاص كيميائية معتمدة مع ارتداء معدات الوقاية الشخصية المناسبة. أما البنتان فهو شديد الاشتعال، لذا يجب إبعاده عن مصادر الاشتعال والتعامل معه فقط داخل خزانة استخلاص كيميائية معتمدة مع ارتداء معدات الوقاية الشخصية المناسبة. تخلص من نفايات المذيبات العضوية في حاويات نفايات المذيبات المهلجنة وغير المهلجنة المعتمدة وفقاً لسياسات البيئة والصحة والسلامة (EH&S) المتبعة في المؤسسة.
- داخل خزانة استنشاق الأدخنة، قم بتحضير محاليل مخزنة بتركيز 25 mg/mL لكل من POPC (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine)، وPOPE (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine)، وCL (cardiolipin: 1,3-bis(sn-3’-phosphatidyl)-sn-glycerol؛ من أنسجة قلب البقر) في الكلوروفورم بشكل منفصل.
- قم بتحضير CoQ10 بتركيز 10 mM في الكلوروفورم. لتحضير 25 mg من خليط الدهون الكلي، أضف 0.4 mL (10 mg) من POPC، و0.4 mL (10 mg) من POPE، و0.2 mL (5 mg) من CL، و50 µL من CoQ10 بتركيز 10 mM (بحيث يكون التركيز النهائي 500 nmol CoQ10 (أي 20 nmol CoQ10/mg دهون)) من المحاليل المخزنة في أنبوب اختبار زجاجي سعة 13 mL. تكون النسبة النهائية بالوزن لـ POPC:POPE:CL هي 2:2:1.
- جفف الخليط تحت تيار من غاز خامل (أرجون أو نيتروجين) لإزالة الكلوروفورم مع تدوير الأنبوب بلطف لتشكيل طبقة رقيقة من خليط الدهون على جدران الأنبوب. استمر في التجفيف بتيار ثابت من الغاز الخامل لمدة 10 min.
- أعد إذابة طبقة الدهون المجففة باستخدام 1 mL من البنتان وكرر الخطوة 2.3، وذلك لتسهيل إزالة ما تبقى من الكلوروفورم.
- ضع أنبوب الدهون المجففة في مجفف تفريغ (vacuum desiccator) في درجة حرارة الغرفة طوال الليل لإزالة المذيبات تماماً.
- أضف 5 mL من منظم البروتوليبوسومات (Proteoliposome Buffer - PLB؛ 10 mM MOPS pH 7.4، و150 mM KCl) لإعادة ترطيب خليط الدهون، وأغلق الأنبوب بإحكام لتجنب أي تسرب، ثم قم برج الأنبوب باستخدام جهاز الـ vortex بلطف حتى تذوب الدهون تماماً (بحيث لا تعود الدهون المجففة مرئية على سطح الأنبوب).
- أزل السدادة، واملأ الأنبوب بغاز خامل (أرجون أو نيتروجين)، ثم أعد إغلاق الأنبوب، واتركه في درجة حرارة الغرفة لمدة 1 h. بعد فترة الحضن لمدة 1 h، قم بتقسيم خليط الدهون إلى حصص حجمها 300 µL وخزنها في درجة حرارة −20 °C.
ملاحظة: تم اختيار خليط POPC:POPE:cardiolipin بنسبة (2:2:1) بناءً على تحسين تجريبي ولأن PE والكارديوليبين يمثلان مكونات رئيسية في الغشاء الداخلي للميتوكوندريا؛ ومع ذلك، يمكن تكييف البروتوكول بسهولة لاختبار تركيبات دهنية بديلة.
3. إعادة تشكيل معقدات SC الميتوكوندرية في الليبوسومات
- أذب حصص SC المخزنة في النيتروجين السائل Liquid N 2 (الخطوة 1.12) على الثلج. أجرِ عملية تبديل للمنظم لإزالة الغليسيرول من العينة عن طريق إعادة تعليق العينة في منظم SEC. ركز العينة باستخدام مرشحات طرد مركزي بحد قطع 100 kDa عند 3000 × g في درجة حرارة 4 °C. بين دورات التركيز (تقريباً كل 5 دقائق)، استمر في إجراء تبديل للمنظم عن طريق إعادة تعليق العينة في منظم SEC.
- تحقق من التركيز النهائي لـ SC باستخدام مقايسة BCA (طقم مقايسة بروتين حمض البيسينكونينيك).
- أذب حصة بحجم 300 µL من خليط الدهون المحضر في الخطوة 2.7 وقم ببثقها عبر باثق مجهز بغشاء بولي كربونات بقطر 100 nm لست دورات في درجة حرارة الغرفة (تتكون الدورة الواحدة من تمرير خليط الدهون من المحقنة اليسرى إلى اليمنى وبالعكس). بعد اكتمال دورات البثق، اجمع الليبوزومات الناتجة بقطر 100 nm من المحقنة المقابلة لجهة البدء. بدلاً من ذلك، يمكن توليد الليبوزومات عن طريق السونيكة (المعالجة بالموجات فوق الصوتية).
- أضف 9 µL من منظف بتركيز 20% (w/v) (التركيز النهائي 0.6% w/v) إلى 250 µL من خليط الدهون المبثوق في أنبوب منفصل.
ملاحظة: يمكن تجربة منظفات مختلفة. وقد حقق منظف كولات الصوديوم، وهو ملح صفراوي أنيوني، أفضل النتائج في هذه التجارب. - امزج عن طريق القلب وحضن العينة عند 4 °C لمدة 30 دقيقة.
- أضف 120 µg (أو أكثر) من SC الميتوكوندري و 3 µL من cytochrome c بتركيز 10 mM (التركيز النهائي 100 µM) إلى الخليط. أكمل الحجم إلى 300 µL باستخدام PLB. تكون نسبة الدهون إلى البروتين النهائية تقريباً 10:1 (w:w). كعنصر تحكم إضافي، قم بتوليد ليبوزومات فارغة بالتوازي عن طريق إضافة منظم SEC (30 mM HEPES, pH 7.8, 150 mM potassium acetate, 1 mM EDTA, 0.005% من منظف الغليكوسيد) إلى خليط الدهون والمنظف بدلاً من SC الميتوكوندري و cytochrome c.
- امزج عن طريق القلب وحضن العينة عند 4 °C لمدة 30 دقيقة.
- اغسل عمود طرد مركزي لإزالة الأملاح معبأ مسبقاً يحتوي على راتنج G-25 باستخدام منظم PLB أربع مرات عن طريق التدفق بالجاذبية. ثم، اغسل العمود بالطرد المركزي عند 1,000 × g لمدة 2 دقيقة.
- أضف عينة البروتوليبوزوم إلى عمود G-25 المعبأ مسبقاً والمغسول، وقم بتدوير العمود عند 1,000 × g في درجة حرارة 4 °C لمدة 2 دقيقة لإزالة المنظف. اجمع السائل الناضح.
ملاحظة: أظهرت الليبوزومات المحضرة بالبثق توزيعاً أكثر تجانساً في الحجم من تلك الناتجة عن السونيكة. لا تقم بتدوير عمود إزالة الأملاح المعبأ مسبقاً لفترة أطول مما يوصي به المصنع، لتجنب تلوث العينة بالمنظف. خُزنت البروتوليبوزومات عند 4 °C واستُخدمت عادةً خلال 36 ساعة لتقليل الفقد المحتمل في النشاط والحفاظ على سلامة المعقدات الفائقة.
4. مقايسة تعويم الدهون29
- قم بتحضير محاليل من السكروز بتركيز 27% و 7% (وزن/حجم) في وسط PLB. جهّز تدرجاً مرحلياً عن طريق وضع 1.5 mL من السكروز بتركيز 27% وفوقها 0.9 mL من السكروز بتركيز 7% في أنبوب طرد مركزي سعة 3.5 mL.
- ضع 300 µL من البروتيوليبوزومات (من الخطوة 3.9) التي تحتوي على SC برفق فوق تدرج السكروز. قم بإجراء الطرد المركزي للتدرجات عند 100,000 × g في دوار ثابت الزاوية لمدة 2 h عند درجة حرارة 4 °C.
- اجمع بعناية (مع محاولة تجنب الخلط) تسعة أجزاء سعة 300 µL لكل منها (أو 10 أجزاء سعة 270 µL) من الأعلى إلى الأسفل. أعد تعليق الراسب، في حال وجوده، في الجزء الأخير واجمعه كجزء رقم 9 أو 10. يجب أن يتجمع أي SC غير معاد تشكيله في الجزء 9 أو 10.
ملاحظة: يساعد اختبار التعويم في فصل البروتيوليبوزوزومات المعاد تشكيلها عن الليبوزومات الفارغة والمعقدات البروتينية غير المعاد تشكيلها، ويُستخدم لتحسين عملية إعادة التشكيل.
5. مقايسة نشاط الفيريسيانيد الطيفية لـ CI ومقايسة نشاط CI في الهلام
- قم بتحضير الكمية اللازمة من محلول منظم تفاعل الفيريسيانيد (FRB؛ 20 mM Tris HCl، pH 7.4، 50 mM NaCl، 0.1% w/v 3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate (CHAPS)، 1 mM potassium ferricyanide).
- قم بتوزيع 990 µL من محلول منظم التفاعل في كيوفيت سعة 1 mL. أضف 5 µL من العينة (من كل جزء من تدرج التركيز) إلى الكيوفيت، ثم أضف 5 µL من 20 mM NADH (التركيز النهائي 100 µM) إلى التفاعل. أغلق الكيوفيت بغشاء شفاف واخلط عن طريق القلب.
- راقب معدل انخفاض الامتصاصية عند 340 nm في درجة حرارة 25 °C باستخدام جهاز مطياف. يشير الانخفاض في الامتصاصية عند 340 nm إلى أكسدة NADH. كرر العملية لجميع الأجزاء في ثلاث مكررات. استخدم 5 µL من PLB بدلاً من العينة لتسجيل العينة الفارغة (blank).
- احسب معدل أكسدة NADH بعد طرح قيمة العينة الفارغة، ثم ارسم مخطط النشاط الكلي لكل جزء من الأجزاء.
ملاحظة: بدلاً من ذلك، يمكن إجراء التجربة في لوح يحتوي على 96 بئراً. - قم بتجميع الأجزاء ذات النشاط الكلي الأقصى (تجنب الأجزاء الموجودة في قاع الأنبوب والتي تحتوي على نشاط، لأنها تعود إلى بروتينات غير معادة التكوين). أكمل حجم الأجزاء المجمعة إلى حجم إجمالي قدره 20 mL باستخدام PLB لتخفيف السكروز.
- قم بطرد العينات مركزياً عند 150,000 × g، في درجة حرارة 4 °C لمدة 1 h باستخدام دوار ثابت الزاوية. تخلص من supernatant وأعد تعليق الراسب في 200 µL من PLB.
- اخلط 25 µL من الراسب المعاد تعليقه من الخطوة السابقة مع 25 µL من 2% w/v digitonin في PLB واحضنها (بالتدوير) عند 4 °C لمدة 1 h.
- قم بطرد البروتينات غير المستخلصة مركزياً عند 16,000 × g لمدة 20 min. اجمع الـ supernatant.
- أضف 10 µL من صبغة تحميل BN-PAGE إلى 30 µL من الـ supernatant وحملها على gel بنسبة تدرج 3%–12% BN-PAGE. قم بتشغيل جيلين لإجراء اختبارات نشاط CI و CIV داخل الجيل26.
- قم بتشغيل الجيل عند 150 V لمدة 30 min باستخدام محلول منظم BN-PAGE داكن (25 mM Tris، 0.192 g Glycine، 200 mg Coomassie blue). استبدل المحلول المنظم الأزرق الداكن بمحلول منظم أزرق فاتح (25 mM Tris، pH 8.3، 0.192 g Glycine، 20 mg Coomassie blue) وشغله لمدة ساعتين إضافيتين عند 200 V.
- بعد انتهاء التشغيل، انقل الجيلات إلى وعاء مناسب وأجرِ اختبارات نشاط CI و CIV داخل الجيل26.
ملاحظة: للدراسات التركيبية والوظيفية للمركبات المعاد تكوينها في الليبوزومات، استخدم ما تبقى من البروتوليبوزومات المعاد تعليقها من الخطوة 5.6. بمجرد تحسين عملية إعادة التكوين بالكامل، يمكن تخطي الخطوتين 4 و 5 واستخدام البروتوليبوزومات المعاد تكوينها مباشرة من الخطوة 3.
6. مقايسة إخماد فلورة ACMA لقياس سلامة غشاء البروتوليبوزومات المعاد تشكيلها29
- قم بتحضير الكمية اللازمة من منظم تفاعل ACMA (9-amino-6-chloro-2-methoxyacridine) (تركيز 10 mM MOPS بـ pH 7.4، و 15 mM KCl، و 4 µM ACMA، و 0.5 mg/mL من ألبومين المصل البقري (BSA)، و 2 mM 2-Mercaptoethanol).
- وزع 930 µL من منظم التفاعل في خلية قياس 1 mL. أضف 50 µL من البروتيوليبوزومات المعاد تشكيلها إلى الخلية، ثم أحكم إغلاق الخلية واخلطها عن طريق القلب. قم بالتحضين بعيداً عن الضوء لمدة 8 min.
- اضبط معلمات جهاز المطياف على: طول موجة الإثارة 410 nm، وطول موجة الانبعاث 490 nm.
- بعد التحضين، اخلط الخلية مرة أخرى عن طريق القلب واقرأ الفلورية باستخدام جهاز المطياف في درجة حرارة الغرفة لمدة 8 min.
- أضف 4 µL من فالينوميسين بتركيز 20 µM (التركيز النهائي 80 nM) إلى الخلية، واخلط عن طريق القلب، وقم بالقياس لمدة 8 min.
- أضف 6 µL من CCCP بتركيز 1 mM (carbonyl cyanide m-chlorophenyl hydrazone) (التركيز النهائي 6 µM) إلى الخلية، واخلط عن طريق القلب، وقم بالقياس لمدة 8 min.
- لإنشاء ضابط للحويصلات الفارغة، كرر الخطوات 6.2–6.6 ولكن استبدل البروتيوليبوزومات المعاد تشكيلها بـ "ليبوزومات فارغة". يتم إنتاج الليبوزومات الفارغة عبر نفس خطوات البروتيوليبوزومات المعاد تشكيلها ولكن يتم استبدال إضافة SCs أثناء إعادة التشكيل (الخطوة 3.6) بمنظم SEC.
- كرر القياس ثلاث مرات لكل من البروتيوليبوزومات المعاد تشكيلها والليبوزومات الفارغة، ثم ارسم الفلورية النسبية لكل منهما مقابل الوقت.
ملاحظة: يتم قياس البيانات سواء من البروتيوليبوزومات المعاد تشكيلها أو الليبوزومات الفارغة وفق المعادلة (Fi − Fmin)/(Fmax−Fmin)، حيث تمثل Fmax قيمة الفلورية المرجعية الأولية لتلك العينة، وتمثل Fmin أدنى قيمة مرجعية لتلك العينة بعد إضافة CCCP.
تحذير: يعتبر CCCP من فكاك الاقتران الميتوكوندري السام ويجب التعامل معه باستخدام القفازات داخل خزانة استخلاص الأدخنة.
7. قياسات قياس التنفس لاستهلاك الأكسجين لتقييم وظيفة الخلايا الجذعية (SCs) المعاد تكوينها30.
ملاحظة: يتم قياس معدل استهلاك الأكسجين باستخدام نظام قطب الأكسجين من نوع كلارك (Clark-type). وتُجرى المقايسات الوظيفية لخلايا SC المعاد تشكيلها مباشرة على السائل المستخلص من عمود إزالة الأملاح (الخطوة 3.9).
- قم بتجهيز جهاز نظام قطب الأكسجين وفقاً لتعليمات الشركة المصنعة وافتح برنامج التحكم في الجهاز. أضف 2 mL من الماء فائق النقاء إلى غرفة القياس.
- اضبط سرعة التحريك حتى يظل رسم تركيز الأكسجين البياني دون تغيير مع زيادة سرعة التحريك (ابدأ بالقيمة 10، وزدها بمقدار 10 في كل مرة). قم بإزالة ماء MQ وأضف ماءً مشبعاً بالأكسجين (ماء MQ في زجاجة تم رجها بقوة).
- انقر على Calibrate > Liquid-phase calibration > Air-saturated water وانتظر حتى تستقر المعايرة (بمعدل 0 nmol لكل دقيقة). وباستخدام ملعقة صغيرة، أضف بضع بلورات (4–6) من ثيوسلفات الصوديوم إلى وعاء التفاعل لإنشاء حالة صفر أكسجين في الغرفة.
- انتظر حتى يستقر الإشارة قبل المتابعة. احفظ المعايرة ونظف غرفة التفاعل باستخدام 5 × 1 mL من الإيثانول بتركيز 70%، ثم 5 × 1 mL من EDTA بتركيز 0.1 mM، ثم 5 × 1 mL من ماء MQ، ثم 5 × 1 mL من محلول منظم لتفاعل جهاز قياس الأكسجين (ORB؛ 150 mM KCl، 50 mM MOPS pH 7.4، 5 mM MgCl2، 5 mM KH2PO4، 0.02 mM EGTA، 0.5 mg/mL BSA).
- أضف 2 mL من ORB، وانقر على زر “start read” في البرنامج، وانتظر حتى يستقر الرسم البياني. أثناء إضافة البروتيلبوزومات (العينة) إلى غرفة التفاعل، قم بتحديد الرسم البياني في البرنامج للإشارة إلى إضافة العينة.
ملاحظة: يتم تقدير تركيز البروتين في عينة البروتيلبوزوم من إجمالي البروتين المضاف إلى الليبوزومات. وقد تبين أن نسبة البروتين إلى الليبيد 1:12 وتركيز نهائي 50 µg/mL من البروتين في غرفة نظام قطب الأكسجين (2 mL) هو الأفضل. لم يتم قياس حصيلة البروتيلبوزومات بدقة. - بعد استقرار قراءة نظام قطب الأكسجين، أضف NADH إلى غرفة التفاعل وقم في الوقت نفسه بتحديد الرسم البياني في البرنامج للإشارة إلى إضافة NADH. استمر في القراءة لمدة 5 min.
- أضف CCCP وحدد الإضافة في البرنامج، واستمر في القراءة لمدة 5 min.
- أضف مثبطاً (على سبيل المثال، مثبط CI (Piericidin A) أو مثبط CIII2 (Myxothiazol) أو مثبط CIV (NaN3)) وحدد الرسم البياني في البرنامج، واقرأ لمدة 2 min، ثم أوقف القراءة.
- احفظ الرسم البياني ونظف غرفة التفاعل باستخدام 5 × 1 mL إيثانول 70%، و5 × 1 mL EDTA بتركيز 0.1 mM، و7 × 1 mL ماء MQ، و5 × 1 mL من ORB قبل إجراء قياس آخر.
- لتصحيح البيانات بالنسبة لمعدل الخلفية، احسب معدل الخلفية، أي ميل القراءة قبل إضافة NADH، وقم بعمل استقراء خطي لهذا المعدل عبر المدى الزمني للقياس لحساب [O2] المتوقع للخلفية لكل نقطة زمنية. ثم اطرح [O2] الخلفية المستقراة من قيمة [O2] المقاسة لكل نقطة زمنية.
- احسب معدلات استهلاك الأكسجين (OCRs) باعتبارها ميل قياسات تركيز [O2] المصححة للخلفية بعد إضافة كل كاشف.
- لحساب المعدلات بالنسبة إلى OCR بعد إضافة NADH، قم في كل منحنى فردي بقسمة كل OCR مقاس (على سبيل المثال، OCR بعد إضافة NADH وCCCP والمثبط، على التوالي) على OCR المقاس بعد إضافة NADH.
ملاحظة: تنبيه: ثيوسلفات الصوديوم عامل مختزل قوي وقد يتفاعل بعنف مع المؤكسدات أو الرطوبة. يجب التعامل معه باستخدام القفازات. تخلص من النفايات التي تحتوي على المثبطات كنفايات كيميائية خطرة وفقاً للإرشادات المؤسسية.
8. تقدير حجم الليبوزومات المعاد تشكيلها باستخدام تشتت الضوء الديناميكي
- قم بتشغيل جهاز تشتت الضوء الديناميكي (DLS) وانتظر لمدة ~30 min لاستقرار الليزر.
- قم بتشغيل برنامج الحصول على البيانات الخاص بالجهاز وأغلق أي ملفات سابقة.
- قم بترشيح البروتيلبوزومات (0.2 μm) لإزالة أي جسيمات.
- انقل 70 µL من البروتيلبوزومات إلى كوفيت نظيفة، مع تجنب ترك بصمات الأصابع أو اللطخات.
- ضع الكوفيت في الجهاز وأغلق الغطاء بإحكام.
- أنشئ ملفاً جديداً واختر Manual Measurement > Size.
- اضبط درجة الحرارة على 25 °C واجعل مؤشر التوهين (attenuation index) على الوضع التلقائي.
- حدد خصائص المشتت (اللزوجة ومعامل الانكسار؛ على سبيل المثال، RI = 1.330 للماء/المحلول المنظم).
- اضبط معاملات الحصول على البيانات (المدة التلقائية، ~3 قياسات، ومعالجة General Purpose).
- ابدأ القياس وراقب الحجم، ومؤشر التشتت المتعدد (PDI)، ومعدل العد (المستهدف ~100–500 kcps).
- حلل النتائج: تحقق من توزيع الحجم (الشدة/الحجم)، ومؤشر PDI (مقبول إذا كان <0.3)، وجودة الارتباط الذاتي (تضاؤل سلس، وخط أساس مستقر)؛ ثم احفظ البيانات.
9. تحضير وفحص شبكات المجهر الإلكتروني المبرد
- استخدم عينة البروتوليبوزوم الناتجة من الخطوة 5.11 (أو الخطوة 3.9 في حال تخطي الخطوتين 4 و5) لتجهيز شبكات المجهر الإلكتروني (EM grids). قم بتركيز البروتوليبوزومات إذا لزم الأمر عن طريق تكرار الخطوة 5.6 وإعادة التعليق في حجم أصغر من محلول PLB.
- قم بإجراء تفريغ توهجي (Glow-discharge) لشبكات نحاسية ذات 300 مش مطلية بالكربون المثقب لمدة 90 s بتيار 20 mA باستخدام الهواء في نظام تنظيف بالتفريغ التوهجي.
- جهز نظام تجميد غطسي (plunge freezer) آلي للتجميد الغطسي عند رطوبة 95% ودرجة حرارة 15 °C بالمعايير التالية: زمن التجفيف (blot time) 10 s، وقوة التجفيف (blot force) −8، وزمن الانتظار 10 s، وزمن التصريف 0.
- قم بتثبيت الملقط الذي يحمل الشبكة المفرغة توهجياً في نظام التجميد الغطسي.
- أضف 4.0 µL من عينة البروتوليبوزوم إلى الشبكة المفرغة توهجياً على جهاز الغطس الآلي.
- قم بحضن الشبكات لمدة 10 s قبل التجفيف لمدة 10 s والتجميد الغطسي في الإيثان السائل. انقل الشبكات بعناية إلى صندوق الشبكات في غرفة N2 السائل، ثم لاحقاً إلى وعاء تخزين N2 السائل.
- قم بتحميل الشبكات المجمدة وفحصها باستخدام مجهر إلكتروني نافذ (transmission electron microscope) مزود بمحمل عينات مبرد. تم استخدام مجهر إلكتروني نافذ مزود بكاشف إلكتروني مباشر.
- اضبط المجهر وفقاً لتعليمات الشركة المصنعة وافحص الشبكات للبحث عن البروتوليبوزومات المعاد تكوينها. احفظ الصور.
ملاحظة: تحذير: الإيثان السائل سريع الاشتعال ومبرد للغاية؛ تعامل معه باستخدام معدات الوقاية الشخصية (PPE) المناسبة وبعيداً عن مصادر الاشتعال لتجنب الحرائق وإصابات الحروق الباردة. النيتروجين السائل مبرد للغاية وقد يسبب حروقاً باردة شديدة وإزاحة للأكسجين. تعامل معه باستخدام معدات الوقاية الشخصية المخصصة للمواد المبردة واستخدمه فقط في مناطق جيدة التهوية.
النتائج
باستخدام هذا البروتوكول، حددنا ظروف إعادة التكوين المثلى للمجمعات الفائقة الميتوكوندرية (SCs) المعزولة من ميتوكوندريا قلب الخنازير (الشكل 1A,B). يفصل بروتوكول تدرج السكروز المتدرج بفعالية الليبوزومات البروتينية المعاد تكوينها عن الحويصلات الفارغة والبروتينات غير المدمجة، مما يتيح الاختبار السريع وتحسين الظروف. تظهر النتائج التمثيلية في الشكل 2 تدرجاً مع العينة المطبقة قبل وبعد عملية الطرد المركزي. بالإضافة إلى ذلك، قمنا بتحسين المنظف المستخدم لإعادة تكوين المجمعات الفائقة التنفسية في الليبوزومات. حيث استُخدمت أربعة منظفات مختلفة — منظف أملاح الصفراء الأنيونية، وCHAPS، وdigitonin، ومنظف الغليكوزيد — بشكل منفصل لإعادة التكوين مع المجمعات الفائقة. تم قياس إجمالي نشاط CI في الكسور عن طريق مقايسة أكسدة واختزال NADH-ferricyanide لكل منظف تم اختباره (الشكل 3A–D). بالنسبة لعمليات إعادة التكوين الناجحة، لوحظ أقصى نشاط لـ CI في الكسور عند الواجهة بين تركيزي السكروز (27% w/v sucrose و 7% w/v sucrose). ومن الملاحظ أنه تم رصد حد أدنى من النشاط في الكسر #10 لمنظف أملاح الصفراء الأنيونية وCHAPS، بينما أظهر الكسر #10 لكل من digitonin ومنظف الغليكوزيد نشاطاً كبيراً، مما يشير إلى أن digitonin ومنظف الغليكوزيد لا يعيدان تكوين المجمعات الفائقة في الليبوزومات بفعالية. وقد استُخدم منظف أملاح الصفراء الأنيونية في جميع عمليات إعادة التكوين اللاحقة.
يُظهر مقايسة نشاط CI و CIV داخل الهلام (in-gel activity assay) التي أجريت على هلام الفصل الكهربائي للبروتينات باستخدام بولي أكريلاميد الطبيعي الأزرق (BN-PAGE) للبروتوليبوزومات المستخلصة بالديجيتونين والمكونة من POPC:POPE:CL بنسبة (2:2:1)، الكميات النسبية من SC ومعقدات ETC الفردية بعد إعادة التشكيل (الشكل 4). وتشير النتائج إلى أن التفاعل بين CI و CIII2 ظل محفوظاً إلى حد كبير في البروتوليبوزومات بعد إعادة الاستخلاص بالديجيتونين و BN-PAGE. ورغم وجود بعض نشاط CIV في نطاق المعقد الفائق (supercomplex band)، فقد لوحظت أيضاً إشارة قوية عند وزن جزيئي أقل تتوافق مع CIV بمفرده، مما يشير إلى حدوث تفك. تم قياس نفاذية الغشاء لليبوزومات المعاد تشكيلها باستخدام مقايسة إخماد فلورية ACMA، مما يشير إلى أن البروتوليبوزومات لم تكن مسربة للبروتونات بشكل ملحوظ (الشكل 5A،B). قُدّر حجم الليبوزومات المعاد تشكيلها باستخدام DLS، حيث أظهر أن عملية البثق (extrusion) قبل إعادة التشكيل تؤدي إلى توزيع نهائي لحجم البروتوليبوزومات يبلغ 82.9 ± 0.8 nm للقطر في الحويصلات الفارغة و 10.6 ± 0.4 nm للبروتوليبوزومات المعاد تشكيلها من المعقدات الفائقة RSPs (الشكل 6). استُخدم استهلاك الأكسجين بواسطة البروتوليبوزومات لتقييم وظيفة SC، وهو ما كشف عن استهلاك واضح للأكسجين مدفوع بـ NADH وحساس للمثبطات (الشكل 7A). ويشير رسم معدلات استهلاك الأكسجين (OCRs) بالنسبة إلى OCR بعد إضافة NADH مباشرة إلى درجة الاقتران داخل RSPs؛ أي أن OCR يزداد بمعامل ~1.5 بعد إضافة CCCP مقارنة بإضافة NADH وحده (الشكل 7B). وقد أتاحت شبكات Cryo-EM التي تم فحصها رؤية SCs في غشاء البروتوليبوزوم، مما يؤكد نجاح عملية إعادة التشكيل (الشكل 8A–I).
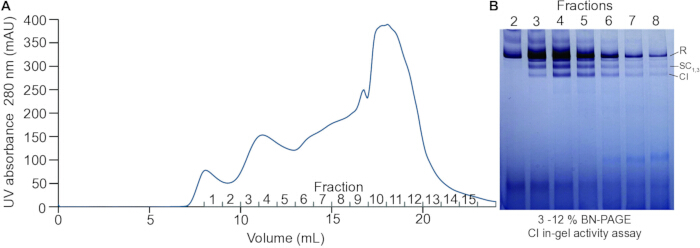
الشكل 1: عزل وتوصيف المعقدات الفائقة المذابة بالمنظفات من ميتوكوندريا قلب الخنازير. (Aكروماتوجرام تمثيلي لتنقية معقدات الغشاء الميتوكوندري الخنزيري المستخلصة بالديجيتونين باستخدام كروماتوجرافيا استبعاد الحجم (SEC).Bفصل كهربائي هلامي بتركيز متباين بالأصباغ الزرقاء (BN-PAGE) لكسور من A تم تصورها عن طريق صبغ نشاط CI داخل الهلام. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
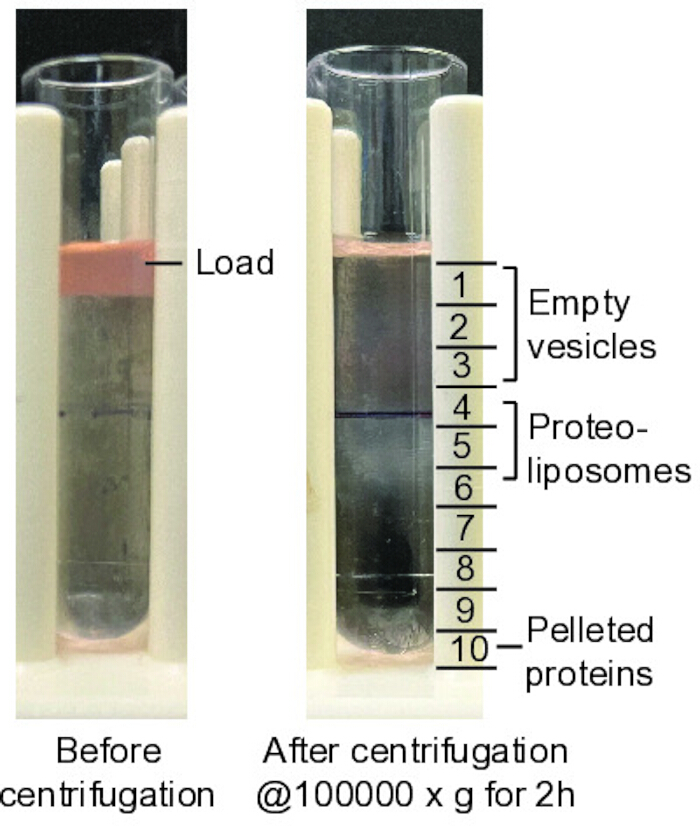
الشكل 2تدرجات السكروز الخطوية باستخدام البروتيو-ليبوزومات. قبل الطرد المركزي (يساراً)، وبعد الطرد المركزي (يميناً) عند 10,0 × g لمدة ساعتين في جهاز طرد مركزي فائق. تنفصل عينة البروتوليبوزومات المحملة على التدرج إلى حويصلات فارغة، وبروتوليبوزومات، وبروتينات متجمعة في القاع. ثم يتم تقسيم هذا التدرج إلى أجزاء لإجراء المزيد من التوصيف كما هو موضح. وقد تم تحديد وتسمية المدى التقريبي لكل جزء. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
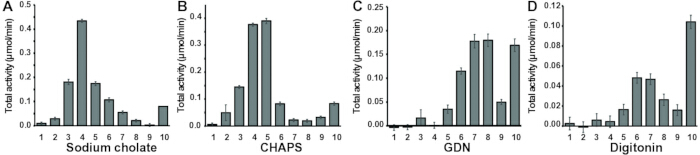
الشكل 3: مقايسة الطفو لتقييم كفاءة إعادة التشكيل في منظفات مختلفةنشاط CI NADH-ferricyanide على الكسور الناتجة من تدرج السكروز المتدرج بعد إعادة التكوين باستخدام (أ) منظف أملاح الصفراء الأنيونية، (ب) 3-[(3-كولاميدوبروبيل) ثنائي ميثيل أمونيوم]-1-بروبان سلفونات (CHAPS) (0.6% (وزن/حجم))، (ج) ديجينيتونين (0.6% وزن/حجم)، (د) منظف الجليكوزيد (GDN) بنسبة (0.6% (وزن/حجم)). الجزء #يتم الحصول على 10 عن طريق إعادة تعليق أي راسب في الجزء الأخير. النشاط في الجزء #يشير الرقم 10 إلى أن البروتينات لم تتم إعادة تكوينها. n = 3 وتوضح أشرطة الخطأ الانحراف المعياري SD = standard deviation. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
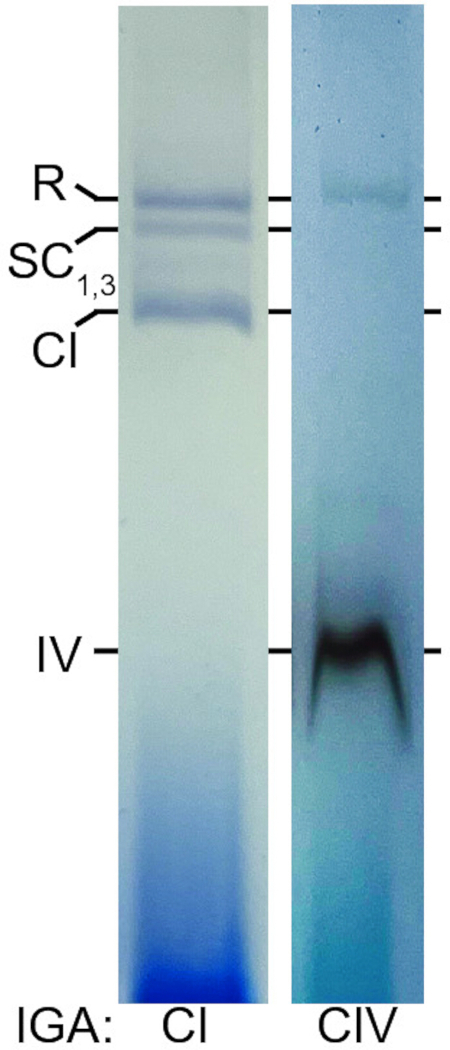
الشكل 4: مقايسة النشاط داخل الهلام لبروتوليبوزومات مستخلصة بالديجيتونين تم فصلها باستخدام الفصل الكهربائي للهلام بتركيز 3%–12% (BN-PAGE). مقايسة النشاط داخل الهلام لـ CI (يسارًا) و CIV (يمينًا). R = ريسبيراسوم (SC I+III)2+IV)، تحت الجلد (SC)1,3 (SC I+III2)، IGA CI = (مقايسة نشاط CI في الهلام)؛ IGA = مقايسة النشاط في الهلام، CIV = (مقايسة نشاط CIV في الهلام). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
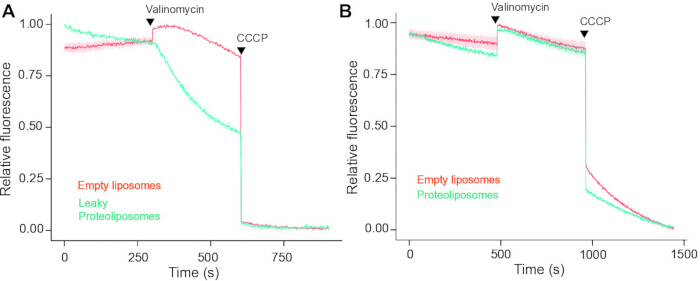
الشكل 5مقايسة إخماد فلورية ACMA للكشف عن تسرب البروتونات في البروتوليبوزومات المعاد تكوينهاباستخدام صبغة حساسة للرقم الهيدروجيني (ACMA)، تمت مقارنة الرقم الهيدروجيني الداخلي لبروتوليبوزومات مُعاد تشكيلها (باللون السماوي) مع ليبوزومات فارغة (باللون البرتقالي) بعد الإضافة المتتابعة للفالينوميسين (Valinomycin) وCCCP. وتظهر في الشكل آثار فلورية ممثلة لصبغة ACMA تم الحصول عليها من تحضيرات مختلفة من البروتوليبوزومات لأغراض المقارنة. (أ) ليبوزومات مُعاد تشكيلها ذات غشاء تالف (مسربة). (ب) ليبوزومات مُعاد تشكيلها ذات غشاء سليم. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
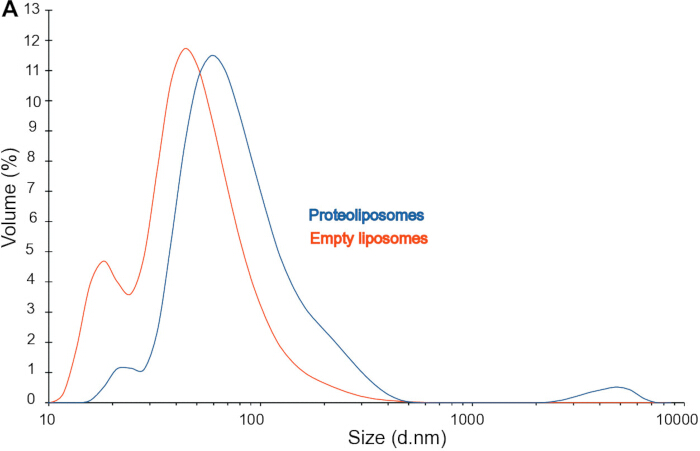
الشكل 6قياسات تشتت الضوء الديناميكي لليبوزومات الفارغة والبروتوليبوزومات المعاد تشكيلها من بروتين SC. تظهر توزيعات الحجم المتوسط الموزونة حجماً لليبوزومات الفارغة المبثوقة (باللون البرتقالي) والبروتوليبوزومات المعاد تشكيلها باستخدام SC (باللون السماوي). أُجريت القياسات كـثلاث تكرارات تقنية. يبلغ متوسط القطر الهيدروديناميكي لليبوزومات الفارغة 82.9 ± 0.8 نانومتر، بينما يبلغ متوسط القطر الهيدروديناميكي لـ RSPs نحو 10.6 ± 0.4 نانومتر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
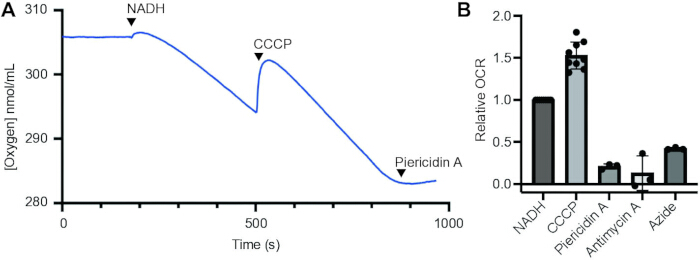
شكل 7: مقايسات استهلاك الأكسجين لتقييم اقتران مجمعات السيتوكروم (SCs) المعاد تشكيلها في الليبوزوماتتم قياس استهلاك الأكسجين لتقييم النشاط التنفسي واقتران معقدات سلسلة نقل الإلكترون (ETC) بعد إعادة تشكيلها في ليبوزومات تم إنتاجها عن طريق البثق. (أ) مخطط نموذجي لمسار قطب الأكسجين المصح للخلفية، يوضح التغيرات في تركيز الأكسجين عقب الإضافة المتتالية لـ NADH لبدء التنفس المدفوع بالمعقد I (CI)، وCCCP لتبديد تدرج البروتونات وقياس أقصى معدل لاستهلاك الأكسجين (OCR) غير المقترن، وpiericidin A لتثبيط المعقد I، وAntimycin A لتثبيط المعقد III (CIII).2، أو NaN3 (الأزيد) لتثبيط CIV. (ب) تقدير كمية معدل استهلاك الأكسجين (OCR) في ظل الظروف المحددة والمصححة وفقاً للخطوة 7.10. وتظهر نقاط البيانات بالنسبة إلى معدل استهلاك الأكسجين بعد إضافة NADH لكل تتبع، إلى جانب المتوسط ± الانحراف المعياري (أشرطة الخطأ). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
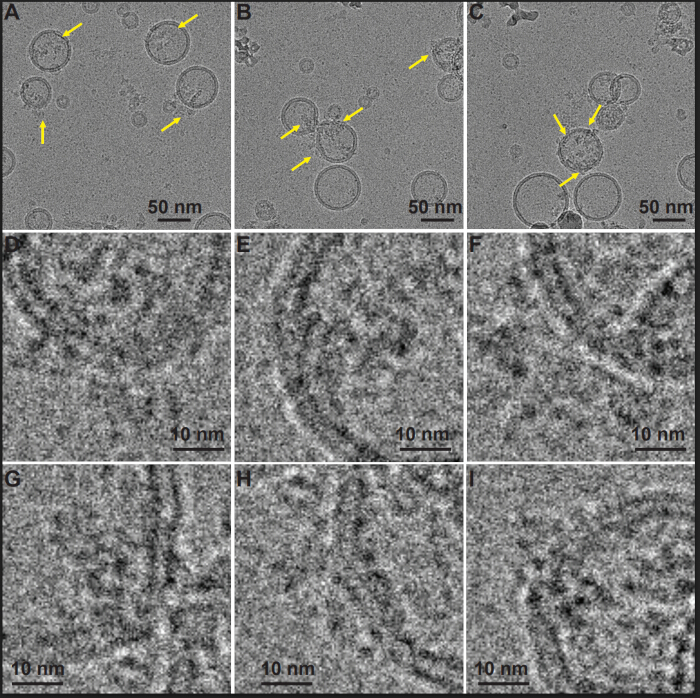
الشكل 8: تصوير مجهري إلكتروني بالتبريد (Cryo-EM) للقنوات الشاردية (SCs) المعاد تشكيلها في أغشية البروتِيوليبوزوم. (أ-ج) صور مجهرية إلكترونية ممثلة لشبكات مفحوصة تظهر معقدات القنوات الشاردية (SCs) المعاد تشكيلها والمرتبطة بأغشية البروتوليبوزوم. يشار إلى معقدات القنوات الشاردية المعاد تشكيلها بأسهم صفراء. أشرطة المقياس = 50 نانومتر. (د-ط) جسيمات SC ممثلة عند تكبير أعلى على أغشية البروتيو ليبوزوم. أشرطة المقياس = 10 نانومتر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
تُقدم هذه الطريقة البسيطة والقابلة للتكرار لإعادة تكوين مجمعات التنفس الميتوكوندرية فائقة (SCs) في ليبوزومات بروتينية محددة، مما يتيح استقصاءً مضبوطاً لبنيتها ووظيفتها. تُعد عدة خطوات في هذا البروتوكول حاسمة لنجاح عملية إعادة التكوين. وبناءً على تجاربنا، فإن الليبوزومات الناتجة عن عملية البثق (extrusion) تمتلك توزيعاً أكثر تجانساً في الحجم (تم تقييمه بواسطة تشتت الضوء الديناميكي) مقارنة بتلك الناتجة عن عملية السونيكاشين (sonication). ويعد الإزالة الفعالة للمنظف باستخدام عمود إزالة الأملاح الدوار مسبق التعبئة أمراً ضرورياً لتعزيز إغلاق الغشاء والدمج الصحيح للمجمعات فائقة (SCs) في طبقة ثنائية الدهون؛ حيث يمكن أن تؤدي الإزالة غير المكتملة إلى إنتاج ليبوزومات بروتينية مسربة أو غير مستقرة. كما أن تحسين تركيب الدهون، ونسب البروتين إلى الدهون، واختيار المنظف لا يقل أهمية، حيث تؤثر هذه المعايير بقوة على كفاءة إعادة التكوين واستقرار المجمعات فائقة (SCs). ويكون اختبار تعويم تدرج السكروز مفيداً للتحسين الأولي؛ ومع ذلك، بمجرد تحديد الظروف، يفضل استخدام الليبوزومات البروتينية مباشرة بعد عمود إزالة الأملاح الدوار مسبق التعبئة للتحليلات البنيوية والوظيفية اللاحقة، وذلك لتجنب فقد العينات وتفككها أثناء تجزئة التدرج. يختلف حجم الجزء المطلوب لملاحظة النشاط من تحضير لآخر، لذا يجب تعديل الحجم المضاف إلى خليط التفاعل وفقاً لمختلف التحضيرات. كما يمكن أن يؤثر اتجاه مجمع التنفس فائق (SC) داخل غشاء الليبوزوم البروتيني بشكل كبير على قياسات التنفس. لم يتم تحسين إجراء إعادة التكوين لفرض توبولوجيا واحدة؛ ولذلك، وعلى الرغم من توقع وجود مجموعة مختلطة من الاتجاهات، إلا أن اختبارات إمكانية الوصول للفيريسيانيد في CI تشير إلى انحياز قوي نحو الأذرع الطرفية لـ CI الموجهة للخارج.
تم تقييم توجيه المركبات الفائقة المعاد تشكيلها تجريبياً، وقِيست نشاطات الفيريسيانيد لـ CI في وجود المنظف وغيابه. في البروتوليبوزومات التنفسية (RSPs) السليمة، لا يمكن لـ NADH المضاف خارجياً الوصول إلا إلى جزيئات CI التي يكون ذراعها المحيطي معرضاً للوسط الخارجي، بينما يسمح النفاذ بالمنظف وصول NADH إلى جميع المركبات. وبذلك، يقدر هذا الاختبار جزءاً من الأذرع المحيطية لـ CI التي يمكن الوصول إليها وظيفياً والتي تواجه الوسط الخارجي، بدلاً من تقديم تحديد هيكلي كامل لطوبولوجيا البروتوليبوزومات. وقد أشار مقارنة النشاطات المقاسة تحت هذه الظروف إلى أن 83.1% ± 0.04% من التنفسومات (the SC) كانت موجهة بحيث يكون الذراع المحيطي لـ CI مواجهاً للخارج، مما يكشف عن انحياز توجيهي ملحوظ أثناء عملية إعادة التشكيل.
يمكن لعدة تعديلات واستراتيجيات لاستكشاف الأخطاء وإصلاحها أن تحسن من قابلية التكرار والاستقرار. تظهر فحوصات النشاط داخل الهلام لـ CI وCIV، والتي أجريت على أجزاء مجمعة مستخلصة بالديجيتونين من تدرجات السكروز، حزمًا لـ SC، مما يشير إلى أن SC لا يتفكك تمامًا أثناء إعادة التشكيل. ومع ذلك، تكون حزمة SC أقوى في هلام نشاط CI مقارنة بهلام نشاط CIV، مما يشير إلى أن CIV قد يتفكك جزئيًا عن CI وCIII2 بعد إعادة التشكيل (الشكل 4). قد يؤدي ضبط تركيب الدهون إلى تعزيز استقرار SC. كما قد ينجم التفكك الجزئي لـ CIV عن اختيار المنظف أو الإزالة السريعة للمنظف أثناء إعادة التشكيل، مما قد يؤدي إلى زعزعة استقرار التفاعلات البروتينية-البروتينية الأضعف داخل المعقد الفائق. وقد يؤدي المزيد من التحسين لظروف تبادل المنظفات إلى تحسين الاحتفاظ بـ CIV. بالإضافة إلى ذلك، يمكن أن يساعد تقليل الإجهاد الميكانيكي، وتجنب خطوات التنقية غير الضرورية، والتعامل بعناية مع العينات في الحفاظ على سلامة البروتيلبوسومات. بالنسبة للفحوصات الوظيفية، يعد ضمان الإغلاق التام للبروتيلبوسومات أمرًا بالغ الأهمية، لأن تسرب الغشاء يمنع الاقتران بتدرج البروتونات عبر الغشائي. وبالنسبة لتحضير شبكات cryo-EM، فإن استخدام الشبكات المطلية بالكربون المستمر أمر مهم لأن هذا قد ثبت أنه يحسن توزيع الجسيمات داخل ثقوب الشبكة19.
على الرغم من مزاياه، فإن هذا النهج يعاني من بعض القيود؛ حيث لا تعيد البروتوليبوزومات تجسيد التعقيد التركيبي والديناميكي للغشاء الميتوكوندري الداخلي الأصلي بشكل كامل، كما يظل التفكك الجزئي لمكونات الـ SC، وخاصة الـ CIV، يمثل تحدياً. وقد تتأثر القراءات الوظيفية أيضاً بالاقتران غير المكتمل أو عدم التجانس في كفاءة إعادة التكوين. ومع ذلك، وبالمقارنة مع الأنظمة المذابة في المنظفات، يحافظ هذا الأسلوب على التفاعلات بين الدهون والبروتينات ويدعم بيئة غشائية شبيهة بالبيئة الأصلية، بينما يوفر تحكماً تجريبياً أكبر من مناهج in situ. وبناءً على ذلك، فإنه يوفر منصة قيمة للدراسة المنهجية لكيفية تنظيم تركيب الدهون وخصائص الغشاء لاستقرار الـ SC ونشاطه.
يُعد فهم هذه العلاقات أمراً بالغ الأهمية بشكل خاص لأن اختلال تنظيم المعقدات الفائقة التنفسية قد ارتبط بمجموعة واسعة من الاضطرابات الميتوكوندرية والأيضية31,32,33,34,35,36,37,38,39,40. إن العيوب في تجميع معقدات سلسلة نقل الإلكترونات (ETC)، أو تخليق الكارديوليبين، أو إعادة تشكيل الدهون، كما لوحظ في اضطرابات مثل متلازمة لي41,42,43,44,45,46,47، ومتلازمة بارث48,49,50,51,52,53,54، ومتلازمة سينجرز48، يمكن أن تزعزع استقرار المعقدات الفائقة، وتضعف نقل الإلكترونات، وتقلل من إنتاج ATP، وتزيد من توليد أنواع الأكسجين التفاعلية (ROS). وتؤثر هذه العيوب في الطاقة الحيوية بشكل غير متناسب على الأنسجة ذات الطلب العالي على الطاقة مثل القلب والعضلات الهيكلية والدماغ، مما يؤدي إلى ظهور أنماط ظاهرية تشمل اعتلال عضلة القلب، وعدم تحمل الجهد البدني، والتنكس العصبي36,37,38. وعلى العكس من ذلك، تشير الأدلة الناشئة إلى أن تكوين المعقدات الفائقة يمكن أن يلعب أدواراً تعويضية ووقائية تحت ظروف الإجهاد عن طريق تثبيت معقدات ETC والحد من إنتاج ROS المرضي55,56. وتوفر منصة البروتوليبوسوم المعاد تشكيلها الموصوفة هنا نظاماً محكوماً لاختبار كيفية تأثير إعادة تشكيل الدهون المرتبطة بالمرض، أو الطفرات، أو التدخلات الدوائية بشكل مباشر على تجميع المعقدات الفائقة ووظيفتها، مما يسمح بإجراء دراسات ميكانيكية حول الخلل الوظيفي للميتوكوندريا ويوجه الاستراتيجيات العلاجية المستقبلية.
قد تنتج معدلات استهلاك الأكسجين المنخفضة عن ضعف دمج المعقدات الفائقة، أو التفكك الجزئي لـ CIV، أو وجود بقايا من المنظف، أو نقص في CoQ10 أو السيتوكروم c، أو تحلل NADH، أو انخفاض تركيز البروتين في غرفة مقياس الأكسجين. تأكد من إعادة التشكيل باستخدام مقايسة التعويم أو BN-PAGE، وتحقق من سلامة الغشاء عن طريق إخماد ACMA، وقم بتحضير NADH طازج، وحسّن نسبة البروتين إلى الدهون، وتركيز العوامل المساعدة، وعملية إزالة المنظف، وتركيز العينة. أما البروتيلبوزومات المسربة فقد تنتج عن الإزالة غير الكاملة للمنظف، أو التركيز المفرط للمنظف، أو التعامل العنيف، أو دورات التجميد والإذابة المتكررة، أو تلف الدهون. في حال لوحظ تسرب البروتونات في مقايسة ACMA، كرر عملية إزالة المنظف باستخدام عمود إزالة الأملاح متوازن حديثاً، وتجنب الدوران المفرط للعمود، وحضّر ليبوزومات طازجة، وقلل من الإجهاد الميكانيكي، واستخدم البروتيلبوزومات فور إعادة تشكيلها. يمكن أن يحدث التكتل أثناء خطوات التركيز بسبب التركيزات المحلية العالية للبروتين أو المنظف عند غشاء المركز. قم بتركيز العينات في دورات طرد مركزي قصيرة (10 min)، وأعد تعليق العينة بلطف بين دورات الدوران، وتجنب التركيز المفرط، وحافظ على العينات عند 4 °C، وأزل التكتلات المرئية عن طريق الترويق منخفض السرعة قبل الاستخدام اللاحق. قد يعكس سلوك التعويم غير المتسق تباين حجم الليبوزومات، أو الإزالة غير الكاملة للمنظف، أو التكتل، أو الطبقات غير الصحيحة للسكروز، أو اضطراب التدرج أثناء تحميل العينة أو جمع الكسور. حضّر محاليل سكروز طازجة، وضع طبقات التدرج ببطء دون خلط الواجهات، واستخدم ليبوزومات مبثوقة بشكل موحد، وحافظ على ثبات ظروف الطرد المركزي، واجمع الكسور بلطف من الأعلى إلى الأسفل. أما سوء توزيع الجسيمات في المجهر الإلكتروني المبرد (cryo-EM) فقد ينجم عن انخفاض تركيز البروتيلبوزومات، أو التكتل، أو الامتصاص التفضيلي للكربون، أو ضعف ترطيب الشبكة، أو سماكة الجليد، أو التنشيف المفرط. قم بتحسين تركيز البروتيلبوزومات، وأزل التكتلات قبل تحضير الشبكة، واضبط ظروف التفريغ المتوهج، واختبر وقت وقوة التنشيف، وافحص أنواعاً مختلفة من الشبكات أو دعامات الكربون، واستخدم عينات محضرة حديثاً كلما أمكن ذلك.
الإفصاحات
يعلن المؤلفون عن عدم وجود تضارب في المصالح.
شكر وتقدير
تم فحص الشبكات في مرفق BioEM Core بجامعة كاليفورنيا، ديفيس. ونشكر الدكتور Fei Guo على المساعدة في عملية الفحص. تم تمويل هذا العمل من قبل NIGMS التابعة لـ NIH بموجب المنحة R35GM137929 (JAL).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1-بال ميتويل-2-أوليول-sn-جليسيرو-3-فوسفوكولين (POPC) | أفانتي ريسيرش (Avanti Research) | 860320 | |
| 1-بالmitoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine (POPE) | أفانتي ريسيرتش (Avanti Research) | 850757 | |
| 1,3-بيس(sn-3’-فوسفاتيديل)-sn-جليسرول (كارديوليبين، مستخلص من أنسجة قلب البقر) | أفانتي ريسيرش (Avanti Research) | 840012 | |
| حمض 2-[4-(2-هيدروكسي إيثيل)بيبرازين-1-يل] إيثان سلفونيك --- HEPES | Sigma-Aldrich | H23830 | |
| حمض 3-(N-مورفولينو) بروبان السلفونيك (MOPS) | Sigma-Aldrich | M12545 | |
| 3,3′-ديامينوبنزيدين ---- DABB | Sigma-Aldrich | D4293 | |
| كربونيل سيانيد م-كلوروفينيل هيدرازون ---- CCCP | Sigma-Aldrich | C2759 | |
| CHAPS | Sigma-Aldrich | 220201 | |
| كلوروفورم | Sigma-Aldrich | 650948 | |
| الإنزيم المساعد Q10 | Sigma-Aldrich | C9538 | |
| سيتوكروم ج من قلب الخيول | Sigma-Aldrich | C2506 | |
| ديجيتونين | Sigma-Aldrich | 300410 | |
| إيثيلين جليكول-بِس(2-أمينو إيثيل إيثر)-N,N,N′،N′حمض رباعي خلات الإيثيلين جليكول --- EGTA | Sigma-Aldrich | E3889 | |
| حمض إيثيلين ثنائي أمين رباعي حمض الخليك -- EDTA | Sigma-Aldrich | E6758 | |
| جليسرول | Sigma-Aldrich | G7893 | |
| جلايكو-ديوسجينين | Anatrace | GDN101 | منظف |
| لوريل مالتوز نيوبنتيل جليكول ---- LMNG | Sigma-Aldrich | NG310 | |
| كلوريد المغنيسيوم | Sigma-Aldrich | M8266 | |
| ميكسوثيازول | Sigma-Aldrich | T5580 | |
| نيكوتيناميد أدينين ثنائي نيوكليوتيد (NADH)، ملح ثنائي الصوديوم | Sigma-Aldrich | 481913 | |
| كلوريد النيتروتيترازوليوم الأزرق | Sigma-Aldrich | N6876 | |
| بيريسيدين أ (Piericidin A) | Sigma-Aldrich | 96861 | |
| أسيتات البوتاسيوم | Sigma-Aldrich | P5708 | |
| كلوريد البوتاسيوم | Sigma-Aldrich | P3911 | |
| فروسيانيد البوتاسيوم | Sigma-Aldrich | 702587 | |
| فوسفات البوتاسيوم أحادية القاعدة ---- KH2PO4 | Sigma-Aldrich | P0662 | |
| أزيد الصوديوم | Sigma-Aldrich | S2002 | |
| هيدرات كولات الصوديوم | Sigma-Aldrich | C1254 | |
| كلوريد الصوديوم | Sigma-Aldrich | S9888 | |
| ديثيونيت الصوديوم | Sigma-Aldrich | 71699 | |
| سكروز | Sigma-Aldrich | S9378 | |
| تريس (TRIS) | Sigma-Aldrich | T1503 | |
| ACMA (9-أمينو-6-كلورو-2-ميثوكسي أكريدين) | Sigma-Aldrich | SML4162 | |
| الأجهزة والأطقم | |||
| Amicon® مرشح طرد مركزي فائق، حد قطع الوزن الجزيئي 100 كيلو دالتون، 0.5 مل | Millipore | UFC5100 | |
| Amicon® مرشح طرد مركزي فائق، حد قطع الوزن الجزيئي 100 كيلو دالتون، 15 مل | Millipore | UFC9100 | |
| جهاز الطرد المركزي الفائق Beckman Optima TLX | Beckman Coulter | ||
| هلام الفصل الكهربائي في حالة الطبيعة (BN-PAGE) | هلام الفصل الكهربائي للبروتينات في حالة طبيعية باستخدام صبغة كوماسي الزرقاء (blue-native polyacrylamide gel electrophoresis gel) | ||
| جهاز الطرد المركزي الفائق Beckman Optima XE | Beckman Coulter | ||
| نظام التنظيف بالتفريغ المتوهج | نظام التنظيف بالتفريغ المتوهج | ||
| جهاز Glacios 2 Cryo-TEM المزود بكاشف Gatan K3 | Thermo Fisher Scientific | المجهر الإلكتروني النافذ | |
| طقم مطحنة الأنسجة KIMBLE Dounce | Sigma-Aldrich | D9188 | |
| مكبس Leica Automatic GP2 | Leica | ||
| جهاز طرد مركزي دقيق 16 | Beckman Coulter | A46474 | |
| نظام الكروماتوغرافيا NGC Discover 10 | Bio-Rad | 7880009 | |
| Oxygraph+ | نظام قطب الأكسجين | ||
| عمود إزالة الأملاح PD-10 | Cytiva | 28918007 | عمود طرد مركزي لاستبعاد الحجم |
| طقم تحليل البروتين Pierce BCA | Thermo Fisher Scientific | 23225 | طقم تحليل البروتين بحمض البيكينشونينيك |
| جهاز سونيكيتور Q-125 | Q-sonica | Q125-110 | |
| عمود Sephadex G-25 M | عمود دوران لإزالة الأملاح يحتوي على راتنج G-25 معبأ مسبقاً | ||
| قارئ الأطباق الدقيقة SpectraMax M2 | Molecular Devices | ||
| Superose 6 increase 10/300 GL | Cytiva | 29091596 | وسط ترشيح هلام الأجاروز متشابك الروابط |
| حزمة الدوار ثابت الزاوية TLA-100.3 | Beckman Coulter | 349490 | |
| دوار الزاوية الثابتة من التيتانيوم طراز 50.2 | Beckman Coulter | 337901 | |
| مياه Milli-Q (MQ) | ماء فائق النقاء | ||
| جهاز Malvern Zetasizer ZS لتشتت الضوء الديناميكي (DLS) | Malvern Panalytical | ||
| نظام Hansatech Oxygraph+ | Hansatech Instruments | ||
| نظام تنظيف بالتفريغ المتوهج PELCO easiGlow | TED PELLA, INC | ||
| نظام Vitrobot Mark IV | Thermo Fisher Scientific | المجمّد الغاطس | |
| شبكات نحاسية من نوع Quantifoil R 1.2/1.3 بمسامية 300 مش مع طبقة كربون بسمك 2 نانومتر | TED PELLA, INC | 668-300-Cu-100 | مغطى بالكربون المثقب |
| جهاز البثق المصغر Avanti | Avanti Lipids | 610000 |
المراجع
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature. 1961;191:144-8.
- Dudkina NV, Kudryashev M, Stahlberg H, Boekema EJ. Interaction of complexes I, III, and IV within the bovine respirasome by single particle cryoelectron tomography. Proc Natl Acad Sci U S A. 2011;108:15196-200.
- Althoff T, Mills DJ, Popot JL, Kühlbrandt W. Arrangement of electron transport chain components in bovine mitochondrial supercomplex I1III2IV1. EMBO J. 2011;30:4652-64.
- Schäfer E, Dencher NA, Vonck J, Parcej DN. Three-dimensional structure of the respiratory chain supercomplex I1III2IV1 from bovine heart mitochondria. Biochemistry. 2007;46:12579-85.
- Schägger H, Pfeiffer K. Supercomplexes in the respiratory chains of yeast and mammalian mitochondria. EMBO J. 2000;19:1777-83.
- Milenkovic D, Blaza JN, Larsson NG, Hirst J. The enigma of the respiratory chain supercomplex. Cell Metab. 2017;25:765-76.
- Berndtsson J, et al. Respiratory supercomplexes enhance electron transport by decreasing cytochrome c diffusion distance. EMBO Rep. 2020;21. doi:10.15252/embr.202051015.
- Moe A, Di Trani J, Rubinstein JL, Brzezinski P. Cryo-EM structure and kinetics reveal electron transfer by 2D diffusion of cytochrome c in the yeast III-IV respiratory supercomplex. Proc Natl Acad Sci U S A. 2021;118. doi:10.1073/pnas.2021157118.
- Blaza JN, et al. Kinetic evidence against partitioning of the ubiquinone pool and the catalytic relevance of respiratory-chain supercomplexes. Proc Natl Acad Sci U S A. 2014;111:15735-40.
- Diaz F, Enríquez JA, Moraes CT. Cells lacking Rieske iron-sulfur protein have a reactive oxygen species-associated decrease in respiratory complexes I and IV. Mol Cell Biol. 2012;32:415-29.
- Maranzana E, et al. Mitochondrial respiratory supercomplex association limits production of reactive oxygen species from complex I. Antioxid Redox Signal. 2013;19:1469-80.
- Schägger H, et al. Significance of respirasomes for the assembly/stability of human respiratory chain complex I. J Biol Chem. 2004;279:36349-53.
- Acín-Pérez R, et al. Respiratory complex III is required to maintain complex I in mammalian mitochondria. Mol Cell. 2004;13:805-15.
- Letts JA, Sazanov LA. Clarifying the supercomplex: the higher-order organization of the mitochondrial electron transport chain. Nat Struct Mol Biol. 2017;24:800-8.
- Protasoni M, et al. Respiratory supercomplexes act as a platform for complex III-mediated maturation of human mitochondrial complexes I and IV. EMBO J. 2020;39. doi:10.15252/embj.2019102817.
- Pöverlein MC, Jussupow A, Kim H, Kaila VRI. Protein-induced membrane strain drives supercomplex formation. eLife. 2024;13. doi:10.7554/eLife.102104.1.
- Mandala VS, MacKinnon R. Voltage-sensor movements in the Eag Kv channel under an applied electric field. Proc Natl Acad Sci U S A. 2022;119. doi:10.1073/pnas.2214151119.
- Falzone ME, MacKinnon R. Gβγ activates PIP2 hydrolysis by recruiting and orienting PLCβ on the membrane surface. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2301121120.
- Grba DN, et al. Molecular mechanism of the ischemia-induced regulatory switch in mammalian complex I. Science. 2024;384:1247-53.
- Tao X, Zhao C, MacKinnon R. Membrane protein isolation and structure determination in cell-derived membrane vesicles. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2302325120.
- Zheng W, Chai P, Zhu J, Zhang K. High-resolution in situ structures of mammalian respiratory supercomplexes. Nature. 2024;631:232-9.
- Nakano A, et al. Structures of respiratory supercomplexes and ATP synthase oligomers in mammalian mitochondrial inner membrane. Nat Commun. 2026;17:4075. doi:10.1038/s41467-026-70578-x.
- Coupland CE, et al. High-resolution electron cryomicroscopy of V-ATPase in native synaptic vesicles. Science. 2024;385:168-74.
- Letts JA, Fiedorczuk K, Sazanov LA. The architecture of respiratory supercomplexes. Nature. 2016;537:644-8.
- Letts JA, et al. Structures of respiratory supercomplex I+III2 reveal functional and conformational crosstalk. Mol Cell. 2019;75:1131-46.e6.
- Jha P, Wang X, Auwerx J. Analysis of mitochondrial respiratory chain supercomplexes using blue native polyacrylamide gel electrophoresis (BN-PAGE). Curr Protoc Mouse Biol. 2016;6:1-14.
- Biner O, Fedor JG, Yin Z, Hirst J. Bottom-up construction of a minimal system for cellular respiration and energy regeneration. ACS Synth Biol. 2020;9:1450-9.
- Wright JJ, et al. Reverse electron transfer by respiratory complex I catalyzed in a modular proteoliposome system. J Am Chem Soc. 2022;144:6791-801.
- Lee SY, Letts JA, MacKinnon R. Functional reconstitution of purified human Hv1 H+ channels. J Mol Biol. 2009;387:1055-60.
- Caldeira D de AF, Oliveira DF de, Cavalcanti-de-Albuquerque JP, Nascimento JHM, Zin WA, et al. Isolation of mitochondria from fresh mice lung tissue. Front Physiol. 2021;12:748261. doi:10.3389/fphys.2021.748261.
- Shi H, et al. Global burden of ischaemic heart disease from 2022 to 2050: projections of incidence, prevalence, deaths, and disability-adjusted life years. Eur Heart J Qual Care Clin Outcomes. 2025;11:355-66.
- Rahman S. Mitochondrial disease in children. J Intern Med. 2020;287:609-33.
- Pérez-Albert P, et al. Mitochondrial disease in children: the nephrologist’s perspective. JIMD Rep. 2018;42:61-70.
- Gorman GS, et al. Prevalence of nuclear and mitochondrial DNA mutations related to adult mitochondrial disease. Ann Neurol. 2015;77:753-9.
- Pitceathly RDS, Rahman S. Mitochondrial DNA-related diseases associated with single large-scale deletions and point mutations. In: Gasparre G, Porcelli AM, editors. The Human Mitochondrial Genome: From Basic Biology to Disease. London: Academic Press; 2020. p. 353-74.
- Morán M, et al. Mitochondrial respiratory chain dysfunction: implications in neurodegeneration. Free Radic Biol Med. 2012;53:595-609.
- Chinnery PF. Primary mitochondrial disorders overview. In: Adam MP, Feldman J, Mirzaa GM, Pagon RA, Wallace SE, Bean LJH, et al., editors. GeneReviews®. Seattle: University of Washington, Seattle; 1993–2026. Available from: https://www.ncbi.nlm.nih.gov/books/NBK1224/
- Ellis CE, et al. Mitochondrial lipid abnormality and electron transport chain impairment in mice lacking α-synuclein. Mol Cell Biol. 2005;25:10190-201.
- Hekimi S, Wang Y, Noë A. Mitochondrial ROS and the effectors of the intrinsic apoptotic pathway in aging cells: the discerning killers. Front Genet. 2016;7:161. doi:10.3389/fgene.2016.00161.
- Chouchani ET, et al. Ischaemic accumulation of succinate controls reperfusion injury through mitochondrial ROS. Nature. 2014;515:431-5.
- Van de Wal MAE, et al. Ndufs4 knockout mouse models of Leigh syndrome: pathophysiology and intervention. Brain. 2022;145:45-63.
- Hoefs SJG, et al. NDUFA10 mutations cause complex I deficiency in a patient with Leigh disease. Eur J Hum Genet. 2011;19:270-4.
- Ostergaard E, et al. Respiratory chain complex I deficiency due to NDUFA12 mutations as a new cause of Leigh syndrome. J Med Genet. 2011;48:737-40.
- Marin SE, et al. Leigh syndrome associated with mitochondrial complex I deficiency due to novel mutations in NDUFV1 and NDUFS2. Gene. 2013;516:162-7.
- Adjobo-Hermans MJW, et al. NDUFS4 deletion triggers loss of NDUFA12 in Ndufs4−/− mice and Leigh syndrome patients: a stabilizing role for NDUFAF2. Biochim Biophys Acta Bioenerg. 2020;1861:148213. doi:10.1016/j.bbabio.2020.148213.
- Leshinsky-Silver E, et al. NDUFS4 mutations cause Leigh syndrome with predominant brainstem involvement. Mol Genet Metab. 2009;97:185-9.
- Piekutowska-Abramczuk D, et al. NDUFB8 mutations cause mitochondrial complex I deficiency in individuals with Leigh-like encephalomyopathy. Am J Hum Genet. 2018;102:460-7.
- Bertero E, Kutschka I, Maack C, Dudek J. Cardiolipin remodeling in Barth syndrome and other hereditary cardiomyopathies. Biochim Biophys Acta Mol Basis Dis. 2020;1866:165803. doi:10.1016/j.bbadis.2020.165803.
- Xu Y, et al. Loss of protein association causes cardiolipin degradation in Barth syndrome. Nat Chem Biol. 2016;12:641-7.
- McKenzie M, Lazarou M, Thorburn DR, Ryan MT. Mitochondrial respiratory chain supercomplexes are destabilized in Barth syndrome patients. J Mol Biol. 2006;361:462-9.
- Acehan D, Xu Y, Stokes DL, Schlame M. Comparison of lymphoblast mitochondria from normal subjects and patients with Barth syndrome using electron microscopic tomography. Lab Invest. 2007;87:40-8.
- Dudek J, et al. Cardiolipin deficiency affects respiratory chain function and organization in an induced pluripotent stem cell model of Barth syndrome. Stem Cell Res. 2013;11:806-19.
- Hagen TM, et al. Acetyl-L-carnitine fed to old rats partially restores mitochondrial function and ambulatory activity. Proc Natl Acad Sci U S A. 1998;95:9562-6.
- Schlame M, et al. Phospholipid abnormalities in children with Barth syndrome. J Am Coll Cardiol. 2003;42:1994-9.
- Ayala-Hernandez MG, et al. Respiratory complex III2 assembles complex I via toxic intermediate in mitochondrial disease. bioRxiv. 2025:doi:10.1101/2025.06.17.660237.
- Liang C, et al. Formation of I2+III2 supercomplex rescues respiratory chain defects. Cell Metab. 2025;37:441-59.e11.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً