يدمج هذا البروتوكول بيانات ترانسكريبتومية متعددة الأبعاد مع التعلم الآلي لتحديد الجينات المرتبطة بالشيخوخة والميتوكوندريا في اعتلال عضلة القلب التوسعي، وذلك بغرض اكتشاف المؤشرات الحيوية والتنميط الجزيئي الفرعي.
مقالة بحثية
تحديد الجينات المحورية المرتبطة بالشيخوخة والميتوكوندريا في اعتلال عضلة القلب التوسعي
في هذه المقالة
ملخص
الملخص
يتميز اعتلال عضلة القلب التوسعي (DCM) بتوسع البطين الأيسر والقصور الانقباضي، ويرتبط بالخلل الوظيفي للميتوكوندريا والتنشيط المناعي الالتهابي. ومع ذلك، لا تزال البصمات الجزيئية المرتبطة بالشيخوخة ومسارات تنظيم الميتوكوندريا في حالات اعتلال عضلة القلب التوسعي غير مفهومة بشكل كامل. قامت هذه الدراسة بتحليل ست مجموعات من بيانات النسخ الشاملة ومجموعة واحدة من بيانات تسلسل الحمض النووي الريبوزي أحادي الخلية من قاعدة بيانات Gene Expression Omnibus. وبعد تسوية البيانات، وتصحيح تأثير الدفعة، وتوصيف أنواع الخلايا، تم تحديد الجينات المرشحة المرتبطة بالشيخوخة والميتوكوندريا باستخدام تحليل التعبير التفاضلي، وتحليل شبكة التعبير الجيني المشترك الموزون، وبناء شبكة التفاعلات البروتينية-البروتينية. كما تم فحص الجينات الأساسية بشكل إضافي باستخدام انحدار اختيار وتقلص المطلق الأدنى (LASSO)، والغابة العشوائية، وإزالة الميزات المتكررة لآلة المتجهات الداعمة. وأُجريت تحليلات لارتشاح الخلايا المناعية، والتواصل بين الخلايا، والتنميط الجزيئي الفرعي لتوصيف البيئة المناعية الدقيقة للقلب في حالات اعتلال عضلة القلب التوسعي. وقد ارتبط إجمالي 66 جينًا مرتبطًا بالشيخوخة و16 جينًا مرتبطًا بالميتوكوندريا باعتلال عضلة القلب التوسعي، وكانت مُتركزة بشكل أساسي في مسارات إشارات العامل 1 المحفز بنقص الأكسجة، والفسفرة التأكسدية، والمسارات المرتبطة بسينثاز أكسيد النتريك. وحددت تحليلات التعلم الآلي وتسلسل الحمض النووي الريبوزي أحادي الخلية جينات SERPINE1 وTGFB2 وCYBB وTLR2 كجينات أساسية. وقد أظهر CYBB وTLR2 تعبيرًا عاليًا في الخلايا الوحيدة والخلايا البلعمية، بينما عُبر عن SERPINE1 وTGFB2 بشكل مهيمن في الخلايا السدوية. وأظهر تحليل المشهد المناعي زيادة في تنشيط الخلايا البلعمية الموالية للالتهابات وتغيرًا في التواصل بين الخلايا في عينات اعتلال عضلة القلب التوسعي. وبناءً على تعبير الجينات الأساسية، قُسمت عينات اعتلال عضلة القلب التوسعي إلى نمطين جزيئيين فرعيين مرتبطين بإشارات عامل نمو البطانة الوعائية والتركيب الحيوي لأحماض الصفراء الأولية، على التوالي. يوفر هذا البروتوكول إطارًا متكاملًا لتحديد المؤشرات الحيوية المرشحة والأنماط الجزيئية الفرعية في اعتلال عضلة القلب التوسعي.
المقدمة
يُعد اعتلال عضلة القلب التوسعي (DCM) اضطراباً في عضلة القلب يتميز بتوسع البطين الأيسر وضعف الوظيفة الانقباضية. وهو ثالث أكثر الأسباب شيوعاً لفشل القلب والمؤشر الرئيسي لعمليات زراعة القلب في جميع أنحاء العالم1. وتشير الدراسات القائمة على السكان إلى أن معدل الانتشار يبلغ حوالي 1 من كل 250 شخصاً بالغاً، مع انتشار أعلى لدى الذكور ونسبة كبيرة من الحالات تعزى إلى متغيرات أحادية الجين2. وتشير هذه النتائج إلى أن كلاً من القابلية الوراثية والعوامل البيئية تساهم في ظهور وتطور اعتلال عضلة القلب التوسعي.
تتضمن إمراضية اعتلال عضلة القلب التوسعي (DCM) عمليات مترابطة، بما في ذلك التنشيط الالتهابي، والإجهاد التأكسدي، وموت الخلايا العضلية القلبية المبرمج، واختلال إشارات تحفيز التليف. وقد ارتبطت تعددات الأشكال الجينية الالتهابية، بما في ذلك متغيرات محفز عامل نخر الورم-α، بقابلية الإصابة باعتلال عضلة القلب التوسعي الفيروسي3. كما ارتبط زيادة الإجهاد التأكسدي بموت الخلايا العضلية القلبية وخلل وظيفة البطين الأيسر في الأنواع الفرعية البشرية من اعتلال عضلة القلب التوسعي4. بالإضافة إلى ذلك، فإن التنشيط الشاذ لمسارات إشارات Wnt/β-catenin وcalcineurin/nuclear factor of activated T cells يعزز تضخم عضلة القلب والتليف الخلالي، مما يساهم في تطور المرض5,6. ويعد الخلل الوظيفي للميتوكوندريا مكوناً مهماً آخر في اعتلال عضلة القلب التوسعي نظراً للاحتياجات العالية للخلايا العضلية القلبية من الطاقة. ويمكن أن يؤدي اضطراب التخليق الحيوي للميتوكوندريا، والتوازن الكالسيومي، والبلعمة الذاتية للميتوكوندريا، وسلامة الحمض النووي للميتوكوندريا إلى ضعف الفسفرة التأكسدية والمساهمة في الخلل الوظيفي القلبي التدريجي7,8,9,10.
على الرغم من هذه النتائج الآلية، لا تزال هناك فجوات معرفية مهمة. وبوجه خاص، لم يتم تحديد العلاقات الزمنية والسببية بين إعادة تشكيل البنية الميتوكوندرية والخلل في الطاقة الحيوية خلال بدء وتطور اعتلال عضلة القلب التوسعي (DCM) بشكل كامل11. وقد تم استقصاء العديد من الاستراتيجيات العلاجية؛ حيث أظهر العلاج بالخلايا الجذعية إمكانات تجديدية من خلال تأثيرات جنيبة 세포ية، وحماية خلوية، وتعديل مناعي، ولكن لا يزال من الضروري تحسين مصادر الخلايا، ومسارات التوصيل، والبقاء على قيد الحياة بعد الزرع12. كما توفر نهج العلاج الجيني، بما في ذلك التوصيل القائم على الفيروسات المرتبطة بالأدينو (adeno-associated virus) وتحرير الجينوم القائم على التكرارات العنقودية المتناظرة القصيرة المنتظمة (clustered regularly interspaced short palindromic repeats)، استراتيجيات علاجية دقيقة محتملة. ومع ذلك، لا تزال القيود المتعلقة بالتوجه القلبي، والمناعية الناقلة، والسلامة على المدى الطويل غير محلولة13.
تُستخدم مجموعات البيانات النسخية العامة من المستودعات مثل Gene Expression Omnibus (GEO) على نطاق واسع لاكتشاف المؤشرات الحيوية في اعتلال عضلة القلب التوسعي (DCM). وتوفر هذه الموارد إمكانية الوصول إلى مجموعات سريرية متعددة المراكز، وتدعم الاستقصاءات ذات التكلفة الفعالة والقابلة للتكرار، ويمكنها تحسين القوة الإحصائية من خلال دمج مجموعات البيانات المتقاطعة14. كما يتيح التنميط النسخي فحص الجينات المرشحة على مستوى الجينوم بأكمله، والتصنيف الجزيئي الفرعي، والتحليل على مستوى المسارات15. ومع ذلك، فإن مجموعات البيانات العامة تعاني من قيود متأصلة، بما في ذلك تأثيرات الدفعات التقنية، والتباين السريري والمسببي، والقدرة المحدودة على الاستدلال السببي، والمعلومات الطولية أو الإنذارية غير المكتملة16. وبناءً على ذلك، فإن النتائج المستمدة من مجموعات البيانات النسخية العامة تكون أكثر ملاءمة لصياغة الفرضيات وتحديد أولويات المؤشرات الحيوية المرشحة، وتتطلب التحقق من صحتها في مجموعات مستقلة ونماذج تجريبية.
تعتمد العديد من الدراسات المعلوماتية الحيوية لمرض اعتلال عضلة القلب التوسعي (DCM) بشكل أساسي على تحليل التعبير التفاضلي، وهو ما قد يؤدي إلى نتائج إيجابية كاذبة ولا يحدد بشكل كامل شبكات التعبير الجيني المشترك أو التباين الخلوي داخل أنسجة القلب. ولمعالجة هذه القصور، استخدمت الدراسة الحالية استراتيجية تحليلية متكاملة تجمع بين طرق تكميلية؛ حيث يوفر تحليل النسخ الشامل (Bulk transcriptomic analysis) ملفات تعبير على مستوى الأنسجة مناسبة للمقارنات بين المجموعات التجريبية والضابطة. كما يحدد تحليل شبكة التعبير الجيني المشترك الموزونة (WGCNA) مجموعات جينية مرتبطة بالسمات المظهرية، مما يسمح بتحديد أولويات مجموعات الجينات المرتبطة وظيفياً بدلاً من الجينات الفردية ذات التعبير التفاضلي. ويحدد تحليل شبكة التفاعل بين البروتينات (PPI) الجينات عالية الاتصال بناءً على طوبولوجيا الشبكة. وقد استُخدمت ثلاث خوارزميات للتعلم الآلي — وهي انحدار مشغل تقليص واختيار المزايا الأدنى (LASSO)، والغابات العشوائية (random forest)، وآلة دعم المتجهات مع حذف الميزات المتكرر (SVM-RFE) — لتحديد المؤشرات الحيوية المرشحة عبر مجموعات البيانات المتكاملة¹⁷. ثم استُخدم تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-seq) لفحص أنماط التعبير الخاصة بأنواع الخلايا وشبكات التواصل بين الخلايا18.
على الرغم من دراسة كل من الخلل الوظيفي في الميتوكوندريا والتغيرات الجزيئية المرتبطة بالشيخوخة بشكل منفصل في اعتلال عضلة القلب التوسعي (DCM)، إلا أن ارتباطاتهما المشتركة مع التغيرات النسخية المرتبطة بالمرض لا تزال غير مستكشفة كافياً. دمجت الدراسة الحالية مجموعات بيانات متعددة من النسخ الشامل (bulk transcriptomic) وتسلسل الحمض النووي الريبي أحادي الخلية (scRNA-seq) لتحديد الجينات المركزية المرتبطة بالشيخوخة والميتوكوندريا في اعتلال عضلة القلب التوسعي، وتوصيف البيئة المجهرية المناعية للقلب، وفحص الأنواع الفرعية الجزيئية بناءً على الجينات المحددة. استُخدم هذا النهج المتكامل لتحديد أولويات المؤشرات الحيوية المرشحة وتوفير أساس للدراسات الآلية والتحقق اللاحقة.
البروتوكول
تمت مراجعة جميع الإجراءات الحيوانية والموافقة عليها من قبل لجنة أخلاقيات حيوانات المختبر في المستشفى الثاني التابع لجامعة خنان للطب الصيني (رقم الموافقة HNSZYYYJS2023011150). وقد أجريت جميع الإجراءات وفقاً للمبادئ التوجيهية للمراجعة الأخلاقية لرعاية حيوانات المختبر (GB/T 35892-2018) ومبادئ الـ 3R المتمثلة في الاستبدال والتقليل والتحسين. وترد الكواشف وقواعد البيانات والبرمجيات والمعدات المستخدمة في هذه الدراسة في جدول المواد.
1. موارد البيانات والمواد التجريبية
استُخدمت فئران ذكور معدلة وراثياً من سلالة CTNTR141W بدرجة SPF، تظهر نمطاً ظاهرياً لتوسع عضلة القلب (DCM) التلقائي وبوزن جسم يبلغ 25 ± 2 g، كمجموعة نموذج. واستُخدمت فئران ذكور من سلالة C57BL/6J بدرجة SPF متوافقة في العمر وبوزن جسم يبلغ 25 ± 2 g كمجموعة ضابطة. شملت كل مجموعة 12 فأراً. تم الحصول على جميع الحيوانات من مؤسسات تحمل تراخيص سارية لإنتاج حيوانات المختبر، وأُسكنت في بيئة حاجزية من درجة SPF عند درجة حرارة 22 ± 2 °C ورطوبة نسبية تتراوح بين 40%–60% تحت دورة ضوء/ظلام مدتها 12 h، مع إتاحة الوصول الحر إلى الغذاء والماء المعقمين. وبعد أسبوع من التأقلم، تم الحفاظ على جميع الفئران تحت الظروف نفسها لمدة 4 أسابيع إضافية قبل تقييم وظائف القلب وجمع العينات. كانت جميع الفئران تتراوح أعمارها بين 6–8 أسابيع عند بدء التجربة. تم تخدير الفئران تخديراً عميقاً ثم قتلها رحمةً عن طريق الخلع العنقي.
تم استرجاع سبع مجموعات بيانات ترانسكريبتومية عامة لأنسجة عضلة البطين الأيسر من مرضى يعانون من اعتلال عضلة القلب التوسعي (DCM) من قاعدة بيانات Gene Expression Omnibus (GEO)19. شملت هذه المجموعات ست مجموعات بيانات ترانسكريبتومية شاملة (bulk transcriptomic) ومجموعة بيانات واحدة لتسلسل الحمض النووي الريبوزي أحادي الخلية (scRNA-seq) وهي GSE145154. وقد شمل التحليل كلا الجزأين الخلويين الموجب والسالب لـ CD45، حيث تم دمج أجزاء الخلايا الموجبة والسالبة لـ CD45 قبل عملية التجميع (clustering). واستُخدمت هوية العينة كمتغير الدفعة (batch variable) الرئيسي لعملية التكامل باستخدام Harmony. كما شملت العينات المأخوذة من GSE145154 عينات من البطين الأيسر الطبيعي وعينات من البطين الأيسر المصاب بـ DCM، وتحديداً GSM4307515 وGSM4307516 وGSM4307520 وGSM4307521. كانت مجموعات البيانات المستخدمة في هذه الدراسة هي GSE145154 وGSE5406 وGSE42955 وGSE57338 وGSE79962 وGSE116250 وGSE141910. تم استبعاد جميع العينات بخلاف تلك الخاصة بـ DCM، والاحتفاظ فقط بعينات الضبط (مجموعة Control) وعينات DCM (مجموعة DCM). ولم يتم استبعاد أي عينات بعد مراقبة الجودة. وتتلخص معلومات العينات في مجموعات بيانات GEO المدرجة كما يلي: احتوت GSE5406 على 102 عينة (16 عينة ضبط و86 عينة DCM)؛ واحتوت GSE42955 على 17 عينة (5 عينات ضبط و12 عينة DCM)؛ واحتوت GSE57338 على 231 عينة (136 عينة ضبط و95 عينة DCM)؛ واحتوت GSE79962 على 20 عينة (11 عينة ضبط و9 عينات DCM)؛ واحتوت GSE116250 على 51 عينة (14 عينة ضبط و37 عينة DCM)؛ واحتوت GSE141910 على 322 عينة (161 عينة ضبط و161 عينة DCM).
2. المعالجة المسبقة لبيانات النسخ الشاملة
تَمَّ تنزيل مصفوفات التعبير الخام وملفات التعليقات التوضيحية السريرية لمجموعات البيانات الشاملة الست باستخدام حزمة GEOquery20. استُرجِعت ملفات CEL الخام لمجموعات بيانات المصفوفات الدقيقة Affymetrix، واستُرجِعت مصفوفات العد الخام لمجموعات بيانات RNA-seq. كما أُجري تصحيح الخلفية، والتقييس الكمي، وحساب التعبير لبيانات المصفوفات الدقيقة باستخدام خوارزمية المتوسط القوي متعدد المصفوفات المطبقة في حزمة affy21.
تم تطبيع بيانات تعداد RNA-seq باستخدام طريقة المتوسط المقلّم لقيم M (trimmed mean of M-values) في حزمة edgeR22، ثم حُوّلت إلى قيم عددية لكل مليون (counts per million) محولة لوغاريتمياً بمقياس log₂. كما حُوّلت معرفات المجسات إلى رموز جينية رسمية باستخدام ملفات توصيف خاصة بالمنصة. وفي الحالات التي ارتبطت فيها مجسات متعددة بنفس الجين، تم حساب متوسط قيمة التعبير الجيني.
تمت إزالة تأثيرات الدفعات التقنية (batch effects) عبر مجموعات البيانات باستخدام خوارزمية ComBat في حزمة sva23. وقد تم تحديد مصدر مجموعة البيانات ومنصة الكشف كعوامل دفعات. كما أُجري تحليل المكونات الرئيسية (Principal component analysis) قبل تصحيح الدفعات وبعده لتقييم مدى فعالية إزالة تأثير الدفعة.
3. المعالجة المسبقة لبيانات ترانسكريبتوم الخلية الواحدة وتوصيف الخلايا
تم استيراد مصفوفة التعبير الجيني من GSE145154 إلى Seurat لإنشاء كائن Seurat باستخدام Seurat الإصدار 524. استُبعدت الخلايا منخفضة الجودة باستخدام العتبات التالية: 200–6,000 جين مكتشف لكل خلية، وإجمالي عدد المعرفات الجزيئية الفريدة (unique molecular identifier) أكبر من 500، ونسبة الجينات الميتوكوندرية أقل من 25%. واستُبعدت الخلايا التي تقع خارج عتبات مراقبة الجودة هذه باعتبارها خلايا منخفضة الجودة أو متمزقة. وقد استبعدنا الخلايا منخفضة الجودة بناءً على عتبات مراقبة الجودة المذكورة أعلاه فقط.
أُجري التسوية اللوغاريتمية باستخدام دالة NormalizeData مع عامل قياس قدره 10,000. تم اختيار أعلى 3,000 جين عالي التباين باستخدام دالة FindVariableFeatures بطريقة vst. ثم تمت قياس البيانات باستخدام ScaleData، تلا ذلك تحليل المكونات الرئيسية لتقليل الأبعاد خطياً.
تم تصحيح تأثيرات الدفعة باستخدام خوارزمية Harmony25 من خلال دالة RunHarmony، مع تحديد هوية العينة كمتغير للتجميع. استُخدمت أول 15 مكوناً رئيسياً لتجميع الخلايا باستخدام دالتي FindNeighbors وFindClusters. أُجري التجميع باستخدام خوارزمية Leiden بدقة قدرها 0.15. كما نُفذ تقليل الأبعاد غير الخطي والتصور باستخدام تقنية تقريب وتوقيع المجموعات المتنوعة (UMAP).
تم تحديد أنواع الخلايا باستخدام الجينات العلامة المرجعية جنبًا إلى جنب مع التوصيف الآلي باستخدام حزمة SingleR26. وكانت الجينات العلامة كما يلي: الخلايا البائية، IGKC و MS4A1 و CD79A؛ والخلايا العضلية القلبية، TNNI3 و MYL2 و ACTC1؛ والخلايا البطانية، VWF و PECAM1 و EGFL7؛ والبلاعم، C1QC و C1QB و C1QA؛ والخلايا الوحيدة، S100A8 و S100A9 و G0S2؛ والخلايا القاتلة الطبيعية، NKG7 و GNLY و CCL5؛ وخلايا العضلات الملساء، MYL9 و TAGLN و ACTA2؛ والخلايا السدوية، FBLN1 و LUM و DCN؛ والخلايا التائية، CD3E و CD3G و CD3D.
4. تحليل التعبير التفاضلي وتقييم إثراء مجموعة الجينات
تم إنشاء نموذج خطي باستخدام حزمة limma27 لمقارنة التعبير الجيني بين مجموعتي DCM والمجموعة الضابطة السليمة. وعُرِّفت الجينات التي كانت قيمة P لها < 0.05 وكان التغير في الطي المطلق (absolute fold change) أكبر من 1.5، وهو ما يقابل تغيراً مطلقاً في log₂ fold change أكبر من 0.58، على أنها ذات تعبير تفاضلي ملحوظ.
أُجري تحليل إثراء مجموعة الجينات للعينة الواحدة لحساب درجات الإثراء لمجموعات الجينات المرتبطة بالشيخوخة وتلك المرتبطة بالميتوكوندريا في كل عينة28. وتم تقييم الاختلافات في درجات الإثراء بين مجموعة اعتلال عضلة القلب التوسعي (DCM) ومجموعة الضبط الصحية باستخدام اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test)، مع اعتبار قيمة P < 0.05 ذات دلالة إحصائية.
على مستوى الخلية المفردة، تم حساب درجات الوحدات الوظيفية المرتبطة بالشيخوخة والميتوكوندريا باستخدام دالة AddModuleScore في حزمة Seurat. كما تم تقييم الاختلافات في درجات هذه الوحدات بين المجموعات باستخدام اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test).
تم استرجاع بصمات الجينات المرتبطة بالشيخوخة من قاعدة بيانات CellAge (https://genomics.senescence.info/cells/)، بينما تم الحصول على مجموعات الجينات المرتبطة بالميتوكوندريا من GeneCards (https://www.genecards.org/). وتتوفر قوائم الجينات الكاملة المستخدمة في التقييم في الملف التكميلي 1.
5. بناء شبكة التعبير الجيني المشترك المرجحة
تم الاحتفاظ بأعلى 5000 جين مشفر للبروتينات ذات أعلى تباين في التعبير في بيانات النسخ الشاملة لبناء الشبكة. طُبقت دالة pickSoftThreshold لحساب مؤشر ملاءمة الطوبولوجيا الخالية من المقياس تحت قوى عتبات لينة متعددة. تم تحديد العتبة المثلى على أنها الحد الأدنى من القوة التي تعطي شبكة خالية من المقياس بقيمة R2 أعلى من 0.9. وبناءً على ذلك، اعتُمدت قوة عتبة لينة β = 5 لتحليل الشبكة اللاحق.
تم بناء شبكة تعبير مشترك موزونة وموقعة باستخدام دالة blockwiseModules مع تحديد الحد الأدنى لحجم الوحدة بـ 30. تم حساب معاملات ارتباط بيرسون بين الجين الرئيسي (eigengene) لكل وحدة وبين درجة الإثراء المرتبطة بالشيخوخة أو الميتوكوندريا. واعتُبرت الوحدات التي كان معامل الارتباط المطلق لها أكبر من 0.4 وكانت قيمة P < 0.001 وحدات مرتبطة بشكل ملحوظ.
تم إجراء تقاطع للجينات الموجودة ضمن الوحدات المرتبطة بشكل كبير مع الجينات ذات التعبير المتباين لتحديد الجينات المرشحة المرتبطة بالشيخوخة والمصاحبة لاعتلال عضلة القلب التوسعي (DCM)، والجينات المرشحة المرتبطة بالميتوكوندريا والمصاحبة لاعتلال عضلة القلب التوسعي (DCM).
6. تحليل الإثراء الوظيفي
أُجريت تحليلات الإثراء الوظيفي، بما في ذلك تحليلات الوجود الأنطولوجي للجينات (GO) ومسارات موسوعة كيوتو للجينات والجينومات (KEGG)، على الجينات المرشحة باستخدام حزمة clusterProfiler29. وقد شمل إثراء GO ثلاث فئات قياسية: العملية البيولوجية، والمكون الخلوي، والوظيفة الجزيئية.
أُجريت جميع التحليلات باستخدام توصيفات الأنواع البشرية، ومعدل الاكتشاف الخاطئ (FDR) لتصحيح القيمة الاحتمالية (P-value)، وعتبة قيمة q تبلغ 0.05. واقتصرت مجموعات الجينات على نطاق يتراوح حجمه بين 10 و500 جين، بينما كانت المصطلحات ذات معدل اكتشاف خاطئ (FDR) < اعتُبرت القيمة 0.05 دالة إحصائيًا. وأخيرًا، تم تصوير نتائج إثراء الوجود الجيني (GO). عن طريق وتم عرض المخططات البيانية الشريطية المجمعة، بينما عُرضت نتائج إثراء KEGG باستخدام المخططات الفقاعية.
7. إنشاء شبكة التفاعل بين البروتينات (PPI) وفحص الجينات المحورية
تم إدخال الجينات المرشحة في قاعدة بيانات STRING الإصدار 11.530، مع تحديد الكائن الحي على أنه Homo sapiens وضبط عتبة الثقة في التفاعل على درجة مجمعة تزيد عن 0.7. تم إخفاء العقد غير المتصلة، وتصدير بيانات التفاعل بتنسيق قيم مفصولة بعلامات جدولة.
تم استيراد بيانات التفاعل إلى برنامج Cytoscape الإصدار 3.9.1 للتصور المرئي31. وحُسبت درجات التوبولوجيا للعقد باستخدام إضافة CytoHubba32 عبر ثلاث خوارزميات: درجة الاتصال (Degree)، ومكون الجوار الأقصى (maximum neighborhood component)، ومركزية المجموعة القصوى (maximal clique centrality).
تم تحديد الوحدات الوظيفية الأساسية داخل الشبكة باستخدام ملحق MCODE33 مع المعاملات الافتراضية التالية: حد درجة القطع (degree cutoff) بقيمة 2؛ وk-core بقيمة 2؛ وحد درجة العقدة (node score cutoff) بقيمة 0.2؛ والعمق الأقصى بقيمة 100. وتم تقاطع الجينات التي صُنفت ضمن العشرة الأوائل بواسطة الخوارزميات الطوبولوجية الثلاث جميعها مع الجينات الموجودة في الشبكة الفرعية الأساسية لـ MCODE لتحديد جينات محور التفاعل البروتيني-البروتيني النهائية.
8. اختيار الجينات الأساسية وبناء النموذج التشخيصي بناءً على تعلم الآلة
لضمان إمكانية التكرار والتمثيل المتوازن، تم تقسيم مجموعة بيانات النسخ المتكاملة (bulk transcriptomic dataset) عشوائيًا إلى مجموعات تدريب وتحقق بنسبة 7:3 باستخدام بذرة عشوائية ثابتة (seed = 123456). وقد تم هذا التقسيم بشكل طبقي حسب مجموعة المرض (DCM مقابل المجموعة الضابطة) للحفاظ على نسب فئات متسقة في كلتا المجموعتين. وقبل التقسيم، تم تصحيح تأثيرات الدفعة (batch effects) الناتجة عن مصادر مجموعات البيانات المختلفة باستخدام حزمة sva، كما تم التعامل مع العينات المتكاملة كأتراب موحدة أثناء التخصيص العشوائي.
تم تطبيق ثلاث خوارزميات لتعلم الآلة لفحص الجينات المرشحة. أولاً، تم إجراء انحدار لوجيستي من نوع LASSO عن طريق دالة cv.glmnet في حزمة glmnet34. وقد تم بناء نموذج تصنيف ثنائي باستخدام التحقق المتقاطع خماسي الطيات (5-fold cross-validation)، مع اعتماد AUC كمقياس للتقييم. تم الاحتفاظ بالجينات ذات المعاملات غير الصفرية عند lambda.min كجينات مرشحة.
ثانياً، تم بناء نموذج تصنيف الغابة العشوائية (random forest) يضم 500 شجرة قرار باستخدام حزمة randomForest35. وقد تم ضبط عدد المتغيرات التي تم أخذ عينات منها لكل تقسيم لتكون مساوية للجذر التربيعي لإجمالي عدد الميزات. كما تم قياس أهمية الجينات بناءً على معامل جيني (Gini coefficient)، وتم الاحتفاظ بأهم 10 جينات ذات أعلى درجات أهمية.
ثالثاً، تم تنفيذ تحليل SVM-RFE باستخدام دالة rfe في حزمة caret36. تم ضبط أعداد الميزات لتتراوح بين 1–10، واعتُمد التحقق المتبادل خماسي الطيات (5-fold cross-validation) لتدريب النموذج. وفي النهاية، تم اختيار المجموعة الفرعية من الجينات التي حققت الدقة المثلى في التحقق المتبادل.
عُرِفت الجينات التي حددتها الخوارزميات الثلاث جميعاً بأنها الجينات الأساسية النهائية المرتبطة بالشيخوخة والميتوكوندريا في مرض اعتلال عضلة القلب التوسعي (DCM). ثم تم بناء نماذج تشخيصية باستخدام 10 خوارزميات تصنيف: شجرة القرار، وآلة تعزيز التدرج، والنموذج الخطي المعمم المعزز، وk-أقرب جيران، والانحدار اللوجستي، والشبكة العصبية، والمربعات الصغرى الجزئية، والغابة العشوائية، وآلة ناقل الدعم، وتعزيز التدرج الشديد.
تـم إنشاء منحنيات خصائص التشغيل للمستقبل باستخدام حزمة pROC37. وحُسبت المساحة تحت المنحنى، والدقة، والحساسية، والنوعية لتقييم الأداء التشخيصي في مجموعتي التدريب والتحقق.
تم إجراء تحليل SHapley Additive exPlanations لحساب مساهمة كل جين أساسي في تنبؤات النموذج38. كما تم إنشاء مخططات ملخصة ومخططات شلالية (waterfall plots) لكل عينة. واعتُبر النموذج التشخيصي النهائي الذي حقق مساحة تحت المنحنى (area under the curve) تزيد عن 0.8 في مجموعة التحقق ذا أداء تشخيصي جيد.
9. استنتاج التواصل بين الخلايا
تم استنتاج شبكات التواصل بين الخلايا في البيئة المجهرية للقلب باستخدام حزمة CellChat39. وقد تم إنشاء كائن CellChat باستخدام قاعدة بيانات CellChatDB.human. كما تم تحديد الربيطات والمستقبلات ذات التعبير المتباين باستخدام identifyOverExpressedGenes، وتمت تصفية أزواج التفاعل ذات الدلالة باستخدام identifyOverExpressedInteractions.
تم حساب احتمالات التواصل بين أنواع الخلايا باستخدام computeCommunProb. كما تم تجميع شبكة التواصل العالمية على مستوى أنواع الخلايا باستخدام aggregateNet. وقد تم قياس عدد التفاعلات وقوة التواصل بين كل زوج من أنواع الخلايا وتصويرها باستخدام الخرائط الحرارية والمخططات الشريطية.
10. تقدير كمي لتسلل الخلايا المناعية
تم حساب درجات الإثراء لـ 28 نوعاً من الخلايا المناعية لكل عينة إجمالية باستخدام تحليل إثراء مجموعة الجينات للعينة الواحدة28 ومجموعة جينات توقيع الخلايا المناعية40. واستُخدم اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test) لمقارنة درجات إثراء الخلايا المناعية بين مجموعتي اعتلال عضلة القلب التوسعي (DCM) ومجموعة الضوابط السليمة. واعتُبرت القيمة P < 0.05 ذات دلالة إحصائية.
أُجري تحليل ارتباط بيرسون لتقييم العلاقة بين مستويات تعبير الجينات الأساسية ودرجات إثراء الخلايا المناعية. واعتُبرت جميع الارتباطات التي كانت قيمة P فيها < 0.05 ذات دلالة إحصائية.
11. التجميع التوافقي للتنميط الجزيئي
أُجري تجميع توافقي غير خاضع للإشراف لعينات DCM باستخدام ملفات التعبير الجيني الأساسية عبر حزمة ConsensusClusterPlus41. تم ضبط معاملات التجميع على حد أقصى لعدد المجموعات يبلغ 6، و1000 تكرار لإعادة أخذ العينات، ونسبة إعادة أخذ عينات تبلغ 0.8. اعتُمد تقسيم حول الوسائط (Partitioning around medoids) باستخدام المسافة الإقليدية لعملية التجميع، واستُخدمت بذرة عشوائية ثابتة لضمان قابلية تكرار النتائج.
تم تحديد العدد الأمثل للأنماط الفرعية وفقاً لمخطط مساحة دلتا ودرجات استقرار العناقيد التوافقية، حيث تم تحديد K = 2 في النهاية. كما أُجري تحليل المكونات الرئيسية لمزيد من التحقق من الفصل المتميز بين النمطين الجزيئيين الفرعيين.
تم تطبيق تحليل تباين مجموعة الجينات42 لحساب درجات إثراء مسارات KEGG الخاصة بكل عينة. واستُخدمت حزمة limma27 للكشف عن التنشيط التفاضلي للمسارات بين الأنواع الفرعية، واعتُبرت قيمة P التي تقل عن 0.05 ذات دلالة إحصائية.
12. تقييم وظائف القلب بواسطة تخطيط صدى القلب
تم تخدير الفئران عبر حقن داخل الصفاق لـ 1% sodium pentobarbital (30 mg/kg) وتم تثبيتهم في وضع الاستلقاء الظهري على طاولة عمليات ذات تحكم حراري. بعد إزالة شعر الصدر، تم وضع جل اقتران الموجات فوق الصوتية بالتساوي على المنطقة أمام القلب.
أُجري تخطيط صدى القلب بنمط M الموجه ثنائي الأبعاد عند مستوى العضلات الحليمية للبطين الأيسر باستخدام نظام تصوير بالموجات فوق الصوتية للحيوانات الصغيرة. وتم تسجيل ثلاث دورات قلبية مستقرة متتالية لقياس قطر البطين الأيسر في نهاية الانبساط، وقطره في نهاية الانقباض، والكسر القذفي، والتقصير الجزئي. وقد أجرى أخصائي تصوير بالموجات فوق الصوتية جميع تقييمات تخطيط صدى القلب بطريقة التعمية.
تم اختيار ثلاثة فئران عشوائياً من كل مجموعة لإجراء فحص تخطيط صدى القلب، ومن ثم تم التضحية بهذه الحيوانات الستة إجمالاً لجمع أنسجة عضلة القلب وإجراء قياسات ELISA. أما بقية الحيوانات التجريبية فقد خضعت لمقايسات مختبرية موازية إضافية، ولم يتم إدراج بياناتها في هذه الدراسة.
13. جمع أنسجة عضلة القلب، واستخلاص البروتين، والمقايسة المناعية المرتبطة بالإنزيم الممتزة
بعد إجراء التقييم بتخطيط صدى القلب، تم القتل الرحيم للفئران تحت تخدير عميق. تم حصاد أنسجة القلب بسرعة عبر بضع الصدر الناصفي، وتم تشريح عضلة البطين الأيسر على الثلج. شُطفت الأنسجة المعزولة جيداً بمحلول ملحي منظم بالفوسفات مبرد بالثلج للتخلص من بقايا الدم داخل القلب. وبعد تجفيف السوائل الزائدة باستخدام ورق ترشيح معقم، تم تجميد العينات فورياً في النيتروجين السائل وتخزينها عند −80 °C لغرض استخلاص البروتين لاحقاً، مع تجنب دورات التجميد والذوبان المتكررة بدقة.
تم وزن أنسجة عضلة القلب المجمدة وتقطيعها إلى قطع يبلغ حجمها حوالي 1 mm3 على الثلج. ثم حُللت الأنسجة في محلول RIPA lysis buffer مبرد بالثلج يحتوي على مثبطات البروتياز والفوسفاتاز بنسبة معيارية تبلغ 100 µL من المحلول لكل 10 mg من النسيج. تم تجنيس العينات ميكانيكياً بشكل كامل على الثلج وحضنها لمدة 30 min لتحقيق تحلل خلوي تام.
تم طرد المواد المستخلصة مركزياً عند 12,000 × g لمدة 15 min عند 4 °C. جُمعت الرواسب الناتجة في أنابيب خالية من الإنزيمات، وقُدر تركيز البروتين الكلي باستخدام طقم مقايسة بروتين حمض البيسينكونينيك وفقاً لبروتوكولات الشركة المصنعة. تم توحيد جميع العينات لتصل إلى تركيز بروتيني متماثل باستخدام محلول التحلل.
تم قياس مستويات التعبير البروتيني للجينات المركزية الأربعة في تحللات عضلة القلب باستخدام أطقم مقايسة الممتز المناعي المرتبط بالإنزيم (ELISA) المناظرة. أضيفت المعايير المخففة تسلسلياً وتحللات الأنسجة المعيرة في مكررات (100 µL لكل بئر) إلى ألواح دقيقة مطلية مسبقاً. حُضنت الألواح لمدة 2 h في درجة حرارة الغرفة وغُسلت جيداً باستخدام محلول الغسيل المرفق مع الطقم.
أُضيف إلى كل بئر الأجسام المضادة المقترنة بالإنزيم وحُضنت لمدة 1 h في درجة حرارة الغرفة، ثم تلا ذلك غسيل دقيق. بعد ذلك، أُضيف محلول الكروموجين الخاص بالركيزة، وحُضنت الأطباق لمدة 20 min في درجة حرارة الغرفة في الظلام. ثم أُوقف تفاعل اللون باستخدام محلول الإيقاف، وقِيست قيم الامتصاصية عند 450 nm (الطول الموجي المرجعي: 570 nm) باستخدام قارئ الأطباق الدقيقة متعدد الأطوال الموجية.
14. التحليل الإحصائي
أُجريت جميع التحليلات الإحصائية وتصورات البيانات باستخدام برنامج R الإصدار 4.2.3. وبالنسبة لقياسات تركيز ELISA لكل جين مستهدف (TGFB2, SERPINE1, CYBB, TLR2)، طُبق اختبار Shapiro-Wilk أولاً لتقييم توزيع البيانات الطبيعي في مجموعتي Control وDCM بشكل منفصل. بعد ذلك، استُخدم اختبار F لتقييم تجانس التباينات بين المجموعتين. وقد حُددت طريقة المقارنة بين المجموعات وفقاً لنتائج اختبار تجانس التباين: فإذا كانت التباينات متجانسة (P ≥ 0.05)، اعتُمد اختبار Student’s t-test غير المقترن لمقارنة القيم المتوسطة بين المجموعات؛ أما إذا كانت التباينات غير متجانسة (P < 0.05)، فقد استُخدم اختبار Welch’s t-test المصحح للتحليل. كانت جميع الاختبارات ثنائية الذيل، وحُددت عتبة الدلالة الإحصائية عند P < 0.05. عُرضت البيانات في شكل مخططات صندوقية (boxplots) مدمجة بنقاط بيانات فردية مبعثرة (jittered). كما دُوّنت قيم P لجميع الاختبارات ونوع اختبار t المستخدم بالتفصيل على كل مخطط.
النتائج
المعالجة المسبقة للبيانات وتحليل التعبير التفاضلي
خضعت جميع مجموعات البيانات النسخية الست للمعالجة المسبقة الموحدة وتصحيح تأثير الدفعة قبل التحليل اللاحق. تم تطبيع بيانات المصفوفات الدقيقة باستخدام خوارزمية المتوسط القوي متعدد المصفوفات، بينما تم تطبيع بيانات تعداد RNA-seq باستخدام طريقة المتوسط المقتطع لقيم M. كما تم تطبيق خوارزمية ComBat لإزالة تأثيرات الدفعة التقنية المرتبطة بمصدر مجموعة البيانات ومنصة الكشف. وأظهر تحليل المكونات الرئيسية أن العينات تجمعت حسب مصدر مجموعة البيانات قبل التصحيح، ولكنها توزعت بشكل أكثر تجانسًا بعد التصحيح، دون وجود انفصال مرئي بناءً على الدفعة.
أُجري تحليل التعبير التفاضلي بين مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة السليمة (HC) باستخدام حزمة limma. وأظهرت الخريطة الحرارية لأكثر 20 جينًا تعبيرًا تفاضليًا معنويًا انفصالًا في ملفات التعبير بين المجموعتين (الشكل 1A). وقد تم تحديد ما مجموعه 1,473 جينًا ذات تعبير تفاضلي باستخدام عتبات قيمة P < 0.05 و |log₂ fold change| > 0.58. ومن بين هذه الجينات، كان هناك 819 جينًا مرتفع التعبير، و 654 جينًا منخفض التعبير في عينات عضلة القلب المصابة بـ DCM (الشكل 1B).
بعد ذلك، استُخدم تحليل إثراء مجموعة الجينات للعينة الواحدة لحساب درجات الإثراء لمجموعات الجينات المرتبطة بالشيخوخة والمرتبطة بالميتوكوندريا في كل عينة. وقد اختلف كلا المقياسين بشكل ملحوظ بين مجموعتي DCM و HC (الشكل 1C).
تحليل شبكة التعبير الجيني المشترك الموزون
تم إجراء تحليل شبكة التعبير الجيني المشترك الموزون لتحديد وحدات جينية مرتبطة بدرجات الإثراء المتعلقة بالشيخوخة والميتوكوندريا. استُخدمت 5,00 من الجينات المشفرة للبروتين ذات أعلى تباين في التعبير في مجموعة البيانات الكلية لبناء الشبكة. وعند قوة عتبة لينة تبلغ β = 5، تجاوز مؤشر ملاءمة الطوبولوجيا الخالية من المقياس R2 = 0.9، مما حقق معيار الشبكة الخالية من المقياس (الشكل 1D).
حدد التجميع الهرمي ودمج الوحدات ثلاث وحدات جينية. ارتبطت الوحدات الثلاث بشكل ملحوظ بدرجة الشيخوخة. وأظهرت الوحدة الفيروزية أقوى ارتباط بدرجة الشيخوخة (r = 0.69, P < 0.01). أما بالنسبة لدرجة الميتوكوندريا، فقد ارتبطت الوحدتان الزرقاء والرمادية بشكل ملحوظ، حيث أظهرت الوحدة الزرقاء أقوى ارتباط (r = 0.56, P < 0.01؛ الشكل 1E). وبناءً على ذلك، تم اختيار الوحدة الفيروزية لفحص الجينات المرتبطة بالشيخوخة، والوحدة الزرقاء لفحص الجينات المرتبطة بالميتوكوندريا.
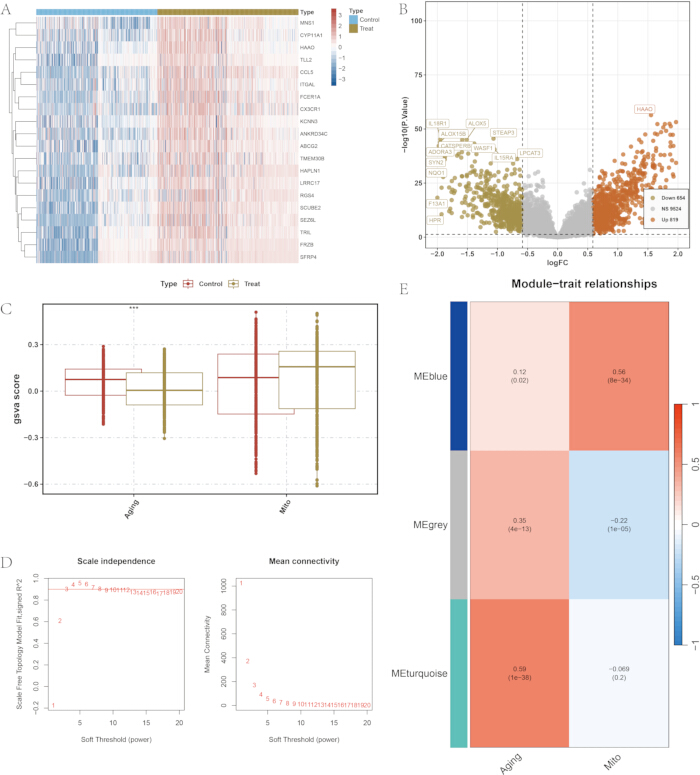
الشكل 1تحليل التعبير التفاضلي وبناء شبكة التعبير الجيني المشترك المرجحة. (A) خريطة حرارية لأكثر 20 جيناً تباينت في تعبيرها بشكل ملحوظ بين مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة السليمة (HC). (B(مخطط بركاني لجميع الجينات ذات التعبير المتباين. يشير اللون الأحمر إلى الجينات ذات التعبير المرتفع، ويشير اللون الأخضر إلى الجينات ذات التعبير المنخفض، ويشير اللون الرمادي إلى الجينات غير ذات الدلالة الإحصائية. كانت العتبات هي القيمة الاحتمالية P value < 0.05 و |log₂ fold change| > 0.58. (كربون) مخططات صندوقية لدرجات تحليل إثراء مجموعة الجينات للعينة الواحدة لمجموعات الجينات المرتبطة بالشيخوخة والمرتبطة بالميتوكوندريا. (داختيار عتبة التنعيم لتحليل شبكة التعبير الجيني المشترك الموزونة، يوضح مؤشر ملاءمة الطوبولوجيا الخالية من المقياس ومتوسط الاتصالية عبر قوى تنعيم مختلفة.هـخريطة حرارية للارتباطات بين الجينات الذاتية للوحدات (module eigengenes) ودرجات الشيخوخة والميتوكوندريا. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحديد الجينات المرشحة المرتبطة بالشيخوخة والميتوكوندريا
تم تحديد الجينات المرشحة عن طريق تقاطع الجينات ذات التعبير المتباين، والجينات الموجودة في وحدات تحليل شبكة التعبير الجيني المشترك الموزونة المختارة، ومجموعات الجينات المرجعية المقابلة. وقد حدد هذا التحليل 6 جيناً مرشحاً مرتبطاً بالشيخوخة في حالات اعتلال عضلة القلب التوسعي (DCM) (الشكل 2A) و16 جيناً مرشحاً مرتبطاً بالميتوكوندريا في حالات اعتلال عضلة القلب التوسعي (DCM) (الشكل 2B).
أظهر تحليل إثراء الوجود الجيني (Gene Ontology) أن الجينات المرشحة المرتبطة بالشيخوخة كانت غنية في العمليات البيولوجية، بما في ذلك الاصطناع الحيوي لإنزيم سينثيز أكسيد النيتريك وتنظيم المصفوفة خارج الخلوية المحتوية على الكولاجين (الشكل 2C). وكانت الجينات المرشحة المرتبطة بالميتوكوندريا غنية في المصطلحات المرتبطة بتمثيل الطاقة في الميتوكوندريا، بما في ذلك الغشاء الداخلي للميتوكوندريا ومعقد السلسلة التنفسية (الشكل 2D).
أظهر تحليل موسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) أن الجينات المرشحة المرتبطة بالشيخوخة كانت مثرية في مسارات تأشير العامل 1 المحفز بنقص الأكسجة، وفوسفاتيديل إينوسيتول 3-كيناز-بروتين كيناز B، ومستقبل نواتج السكر النهائية المتقدمة (الشكل 2E). كما كانت الجينات المرشحة المرتبطة بالميتوكوندريا مثرية في مسارات تشمل الفسفرة التأكسدية (الشكل 2F).
تم تصوير أنماط التعبير التفاضلي لـ 66 جيناً مرشحاً مرتبطاً بالشيخوخة بين مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC) باستخدام خريطة حرارية للتعبير (الشكل 2G). كما تم تصوير أنماط التعبير لـ 16 جيناً مرشحاً مرتبطاً بالميتوكوندريا باستخدام المخططات الصندوقية (الشكل 2H).
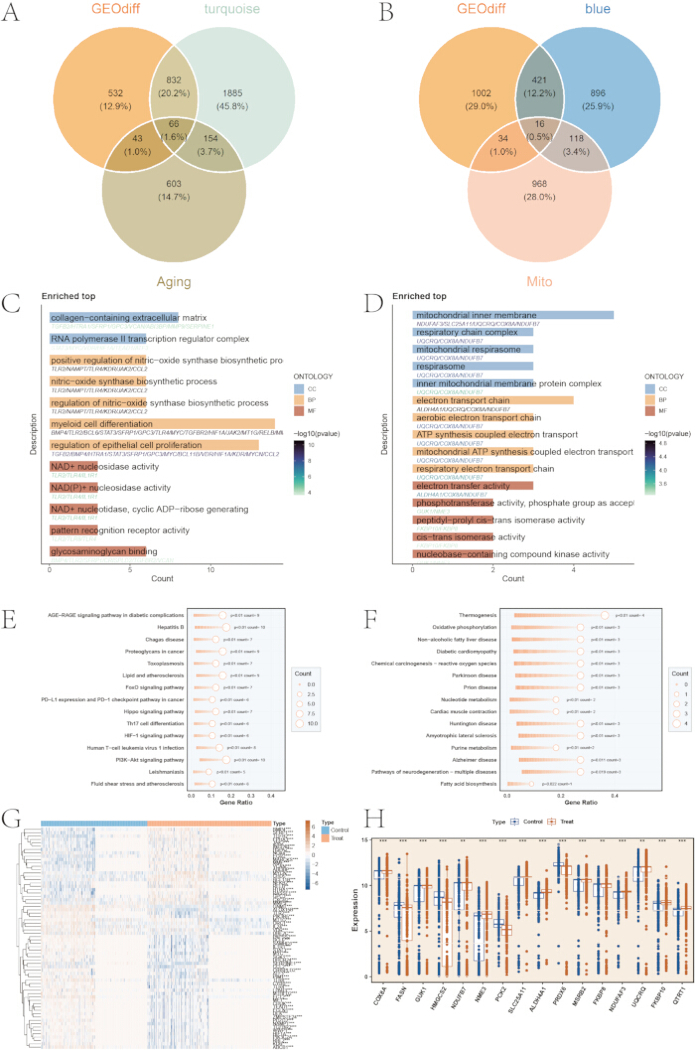
الشكل 2مسح الجينات المرشحة والإثراء الوظيفي. (A(مخطط فين يوضح التقاطع بين الجينات ذات التعبير التفاضلي، وجينات وحدة تحليل شبكة التعبير الجيني المشترك الموزونة، ومجموعة الجينات المرجعية المرتبطة بالشيخوخة.)Bمخطط فين يوضح التقاطع بين الجينات ذات التعبير التفاضلي، وجينات وحدة تحليل شبكة التعبير الجيني المشترك المرجحة، ومجموعة الجينات المرجعية المرتبطة بالميتوكوندريا.سيتحليل إثراء الوجود الجيني (Gene Ontology) للجينات المرشحة المرتبطة بالشيخوخة.د(تحليل إثراء الوجود الجيني (Gene Ontology) للجينات المرشحة المرتبطة بالميتوكوندريا.)هـ(تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات للجينات المرشحة المرتبطة بالشيخوخة.)فتحليل إثراء المسارات باستخدام موسوعة كيوتو للجينات والجينوم (Kyoto Encyclopedia of Genes and Genomes) للجينات المرشحة المرتبطة بالميتوكوندريا.جي (G)(خريطة حرارية للتعبير الجيني لـ 6 جينًا مرشحًا مرتبطًا بالشيخوخة في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (هـمخططات الصندوق للتعبير عن 16 جيناً مرشحاً مرتبطاً بالمتقدرات في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
توصيف أنواع الخلايا لمجموعة بيانات تسلسل الحمض النووي الريبي أحادي الخلية
استُخدمت مجموعة بيانات تسلسل الحمض النووي الريبي أحادي الخلية GSE145154 للتحقق من الدقة على مستوى الخلية الواحدة. وبعد إجراء تصفية مراقبة الجودة، والتطبيع اللوغاريتمي، وتصحيح الدفعات باستخدام Harmony، توزعت الخلايا من العينات المختلفة عبر فضاء التقريب والإسقاط المتشعب الموحد دون وجود فصل مرئي خاص بكل عينة. وباستخدام أول 15 مكوناً رئيسياً ودقة تجميع بلغت 0.15، قُسمت الخلايا إلى 9 مجموعات (الشكل 3A).
حددت الجينات المرجعية المعتمدة والتوصيف الآلي باستخدام SingleR تسعة أنواع رئيسية من الخلايا: البلاعم، والخلايا القاتلة الطبيعية، والخلايا التائية، والخلايا البائية، والخلايا البطانية، وخلايا العضلات الملساء، والخلايا الوحيدة، والخلايا السدوية، والخلايا العضلية القلبية (الشكل 3B). وقد دعمت أنماط تعبير الجينات المرجعية النوعية لكل نوع من الخلايا هذه التوصيفات (الشكل 3C).
تم حساب درجات الوحدة الميتوكوندرية لكل خلية باستخدام دالة AddModuleScore، وقد اختلفت هذه الدرجات بشكل ملحوظ بين مجموعة اعتلال عضلة القلب التوسعي ومجموعة الضوابط السليمة (P < 2.22 × 10⁻16; الشكل 3D). كما اختلفت درجات الوحدة المرتبطة بالشيخوخة بشكل ملحوظ بين المجموعتين (P < 2.2 × 10⁻16; الشكل 3E). وأظهر إسقاط درجات الميتوكوندريا على فضاء التقريب والاسقاط المتشعب الموحد (UMAP) أن الدرجات المرتفعة لوحظت بشكل أساسي في الخلايا العضلية القلبية (الشكل 3F). وفي المقابل، لوحظت الدرجات المرتفعة المرتبطة بالشيخوخة بشكل سائد في الخلايا البلعمية (الشكل 3G).
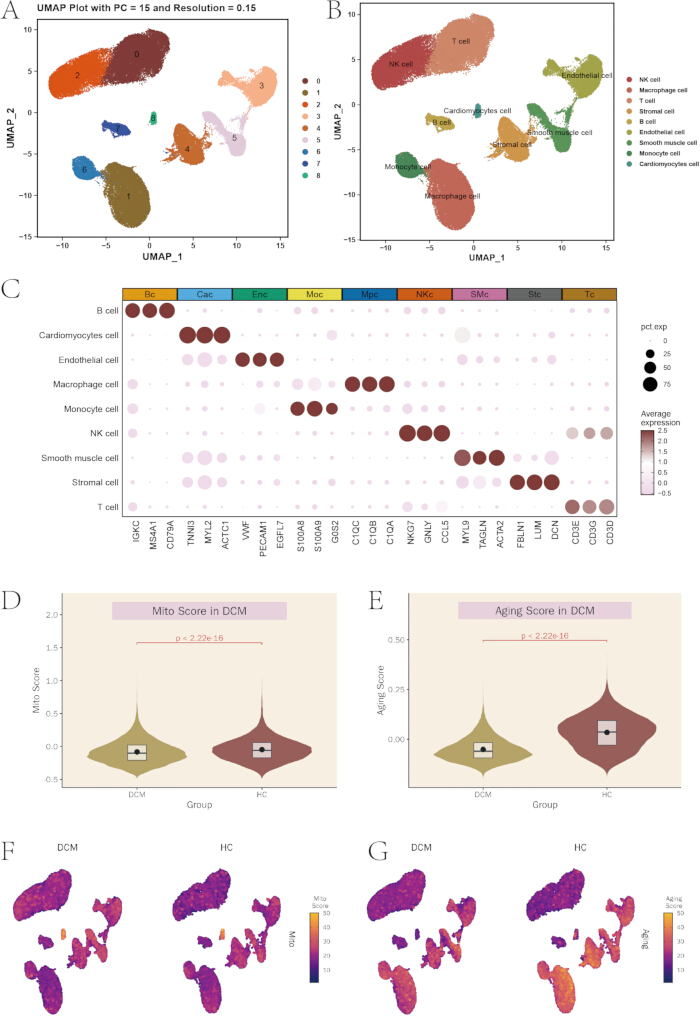
الشكل 3توصيف النسخ المتعددة للخلية الواحدة وتحليل درجات النماذج. (Aمخطط التقريب والإسقاط للمتشعب الموحد (UMAP) لتجمعات الخلايا التي تم إنشاؤها باستخدام أول 15 مكونًا رئيسيًا ودقة تجميع تبلغ 0.15.B(مخطط التقريب والإسقاط للمنطوى الموحد (UMAP) لأنواع الخلايا المشروحة.)كربون(مخطط فقاعي يوضح تعبير جينات العلامات التقليدية عبر أنواع الخلايا. (د) مخطط كمان لدرجات الوحدة الميتوكوندرية في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (هـمخطط الكمان لدرجات الوحدات المرتبطة بالشيخوخة في مجموعتي DCM وHC.ف(مخطط التقريب والإسقاط المتعدد المتجانس الذي يوضح توزيع درجات الوحدة الميتوكوندرية عبر الخلايا.)جيمخطط التقريب والإسقاط متشعب الطيات الموحد (UMAP) الذي يوضح توزيع درجات الوحدات النمطية المرتبطة بالشيخوخة عبر الخلايا. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
بناء شبكة التفاعلات البروتينية-البروتينية
تم إدخال المجموعة المجمعة المكونة من 6 جينًا مرشحًا مرتبطًا بالشيخوخة و16 جينًا مرتبطًا بالميتوكوندريا في قاعدة بيانات STRING الإصدار 1.5 لبناء شبكة تفاعلات بروتينية-بروتينية، وذلك باستخدام حد ثقة عالٍ حيث تكون الدرجة المجمعة > 0.7. تم استيراد الشبكة إلى برنامج Cytoscape لإجراء التصوير والتحليل الطوبولوجي (الشكل 4A).
تم استخدام تحليلات الدرجة، ومركزية النقرة القصوى، ومكون الجوار الأقصى، وMCODE لتحديد العقد شديدة الاتصال والشبكات الفرعية الأساسية. تظهر الشبكات الفرعية التي حددتها هذه الطرق في الشكل 4B–E.
تم تقاطع أعلى 10 جينات مصنفة حسب الدرجة (Degree)، ومركزية المجموعة القصوى (maximal clique centrality)، ومكون الجوار الأقصى (maximum neighborhood component) مع الجينات الموجودة في الشبكة الفرعية الأساسية لـ MCODE. وقد حدد هذا التحليل 10 جينات مرشحة وهي: TGFB2، وTLR2، وSERPINE1، وCYBB، وKDR، وTLR4، وHIF1A، وCCL2، وMMP9، وCXCR2.
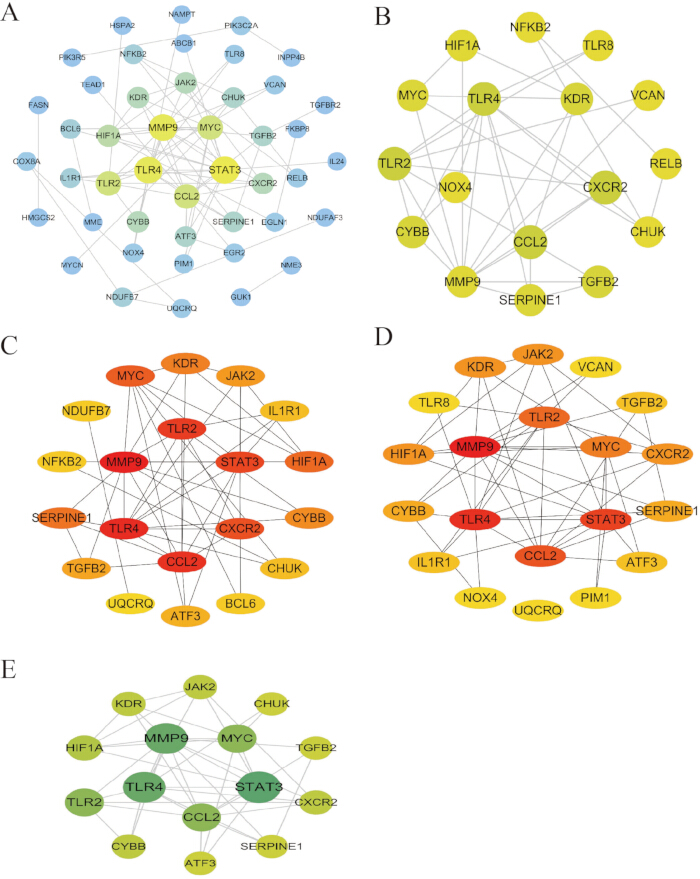
الشكل 4بناء شبكة تفاعلات البروتين-بروتين وفحص الجينات المحورية.
(Aشبكة تفاعل البروتين-بروتين الإجمالية للجينات المرشحة.B( الشبكة الفرعية الأساسية التي تم تحديدها باستخدام MCODE. (كربون(ج) الشبكة الفرعية الجوهرية المحددة باستخدام مركزية الزمرة القصوى. (د) الشبكة الفرعية الجوهرية المحددة باستخدام المكون المجاورة الأقصى. (هـ) الشبكة الفرعية الجوهرية المحددة باستخدام الدرجة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الفحص القائم على تعلم الآلة للجينات المركزية
تم تطبيق ثلاث خوارزميات لتعلم الآلة — وهي الانحدار اللوجستي باستخدام عامل تقليص واختيار المطلق الأدنى (LASSO)، والغابة العشوائية (Random Forest)، وآلة متجه الدعم مع حذف الميزات المتكرر (SVM-RFE) — لفحص الجينات المركزية من بين 10 مرشحات لتفاعل البروتين مع البروتين. أُجريت جميع التحليلات باستخدام بذرة عشوائية ثابتة (set.seed(12345)) والتحقق المتقاطع خماسي الطيات (5-fold cross-validation). وفي نموذج LASSO، تم الاحتفاظ بالجينات ذات المعاملات غير الصفرية عند قيمة لامدا المثلى (lambda.min) كمرشحات (الشكل 5A).
في نموذج آلة متجه الدعم مع حذف الميزات المتكرر، تم تحقيق أعلى دقة للتحقق المتقاطع بلغت 0.859 عند تضمين 10 ميزات (الشكل 5B)، مع معدل خطأ أدنى مقابل قدره 0.141 (الشكل 5C). وأظهر نموذج الغابة العشوائية الذي يحتوي على 50 شجرة قرار تقارباً مستقراً في معدل خطأ خارج الكيس (الشكل 5D). وقد وضع ترتيب أهمية الجينات بناءً على معامل جيني جينات TGFB2 وTLR2 وSERPINE1 وCYBB ضمن الجينات الأعلى ترتيباً (الشكل 5E). وأدى تقاطع الجينات المختارة بواسطة الخوارزميات الثلاث جميعها إلى تحديد أربعة جينات مركزية نهائية هي: CYBB وSERPINE1 وTGFB2 وTLR2 (الشكل 5F).
تم إجراء تحليل SHapley Additive exPlanations لتقييم مساهمة كل جين مركزي في تنبؤات النموذج. سجل TGFB2 أعلى متوسط مطلق لقيمة SHapley Additive exPlanations بمقدار 0.249، يليه SERPINE1 بمقدار 0.103، ثم CYBB بمقدار 0.083، وTLR2 بمقدار 0.078 (الشكل 6A). وأظهر مخطط الملخص توزيع واتجاه مساهمات الجينات عبر العينات (الشكل 6B). كما أوضحت مخططات الاعتماد العلاقة بين قيم الجينات الفردية ومساهمات النموذج (الشكل 6C)، بينما أظهرت مخططات الشلال لكل عينة مساهمة كل جين في التنبؤات الفردية (الشكل 6D).
تم بناء نماذج تصنيف تشخيصية بناءً على الجينات المحورية الأربعة لاحقاً باستخدام 10 خوارزميات تصنيف. وفي مجموعة التدريب، حققت معظم الخوارزميات قيم مساحة تحت المنحنى تزيد عن 0.85 (الشكل 6E). أما في مجموعة التحقق الداخلي، فقد حققت معظم الخوارزميات قيم مساحة تحت المنحنى تزيد عن 0.78 (الشكل 6F).
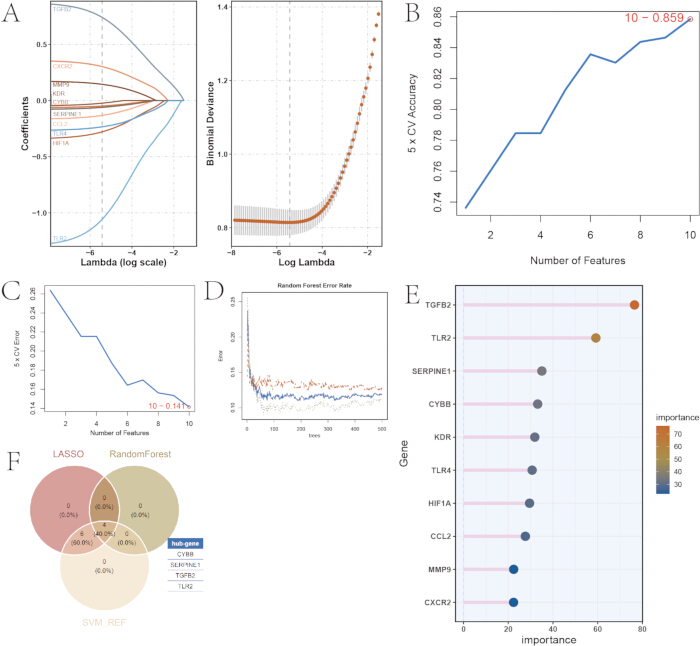
الشكل ٥الفحص القائم على تعلم الآلة للجينات المركزية. (A) مسار معامل انحدار مشغل الاختيار والتقليص المطلق الأدنى واختيار قيمة لامدا المثلى. (B) منحنى دقة التحقق المتقاطع لنموذج آلة ناقلات الدعم مع حذف الميزات المتكرر. (كربون(منحنى خطأ التحقق المتقاطع لنموذج آلة ناقلات الدعم مع حذف الميزات المتكرر.)د(منحنى معدل خطأ خارج الكيس لنموذج الغابة العشوائية. (هـ(ترتيب أهمية الجينات بناءً على معامل جيني في نموذج الغابة العشوائية. ()فمخطط فين يوضح الجينات المركزية التي حددتها خوارزميات تعلم الآلة الثلاث. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
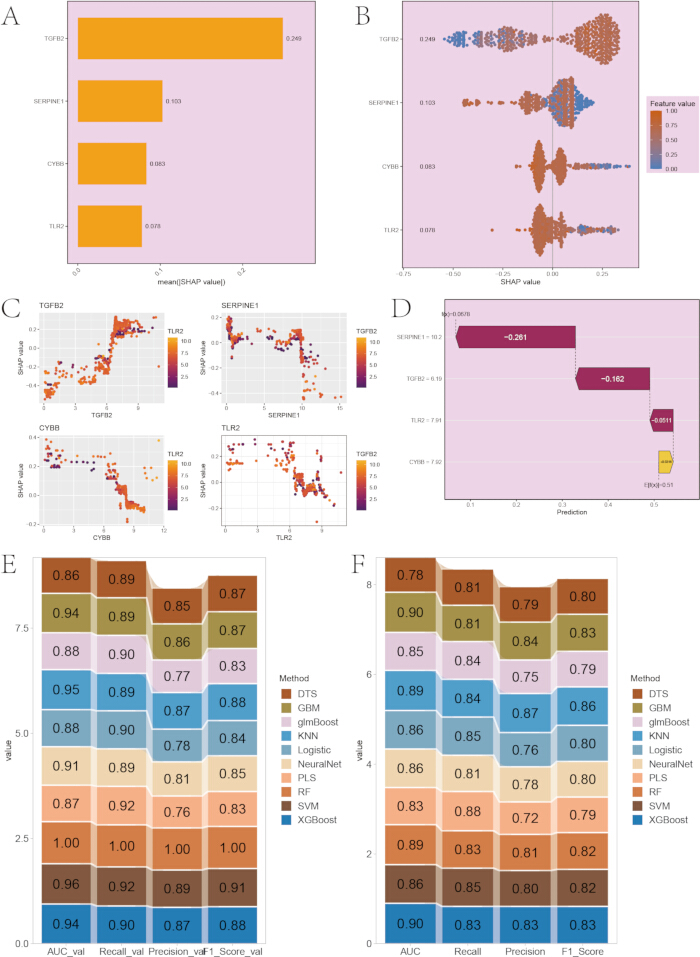
الشكل 6تقييم النموذج التشخيصي وتحليل تفسيرات شابلي المضافة (SHapley Additive exPlanations). (A(قيم متوسطات شابليه التفسيرية المضافة المطلقة للجينات المركزية الأربعة.)B(مخطط ملخص SHapley Additive exPlanations يوضح توزيع واتجاه مساهمات الجينات.)كربونمخططات اعتماد SHapley Additive exPlanations لكل جين مركزي.د(مخطط الشلال للتفسيرات المضافة لشابلي (SHapley Additive exPlanations) لعينة ممثلة. (هـ(خريطة حرارية للأداء التشخيصي لعشر خوارزميات تصنيف في مجموعة التدريب. (فخريطة حرارية للأداء التشخيصي لـ 10 خوارزميات تصنيف في مجموعة التحقق. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التحقق من صحة الخلايا الفردية وتحليل التواصل بين الخلايا
تم تقييم أنماط التعبير للجينات المركزية الأربعة على مستوى الخلية الفردية. وأظهر تحليل توزيع أنواع الخلايا أن CYBB وTLR2 تم التعبير عنهما بشكل عالٍ في الخلايا الوحيدة والبلاعم، بينما تم التعبير عن SERPINE1 وTGFB2 بشكل أساسي في الخلايا السدى (الشكل 7A).
أظهرت مخططات الكمان أن تعبير CYBB اختلف بشكل ملحوظ بين مجموعة اعتلال عضلة القلب التوسعي ومجموعة الضوابط الصحية (الشكل 7B). كما اختلف كل من SERPINE1 (الشكل 7C)، وTGFB2 (الشكل 7D)، وTLR2 (الشكل 7E) بشكل ملحوظ بين المجموعات. وقد شهدت الجينات الأربعة زيادة كبيرة في التنظيم في مجموعة اعتلال عضلة القلب التوسعي مقارنة بالضوابط الصحية، حيث كانت قيمة P < 0.01 لكل مقارنة.
تم استنتاج شبكات التواصل بين الخلايا في البيئة المجهرية للقلب باستخدام CellChat وقاعدة بيانات المستقبِلات والربيطات. واختلفت عدد وقوة التفاعلات الإجمالية بين الخلايا بين مجموعتي اعتلال عضلة القلب التوسعي والمجموعة الضابطة (الشكل 7F). كما لوحظ تباين في قوة التواصل بين أنواع الخلايا (الشكل 7G). وكانت الخلايا الوحيدة، والخلايا البلعمية، والخلايا العضلية القلبية، والخلايا السدوية هي المشاركون الرئيسيون في شبكة التواصل.
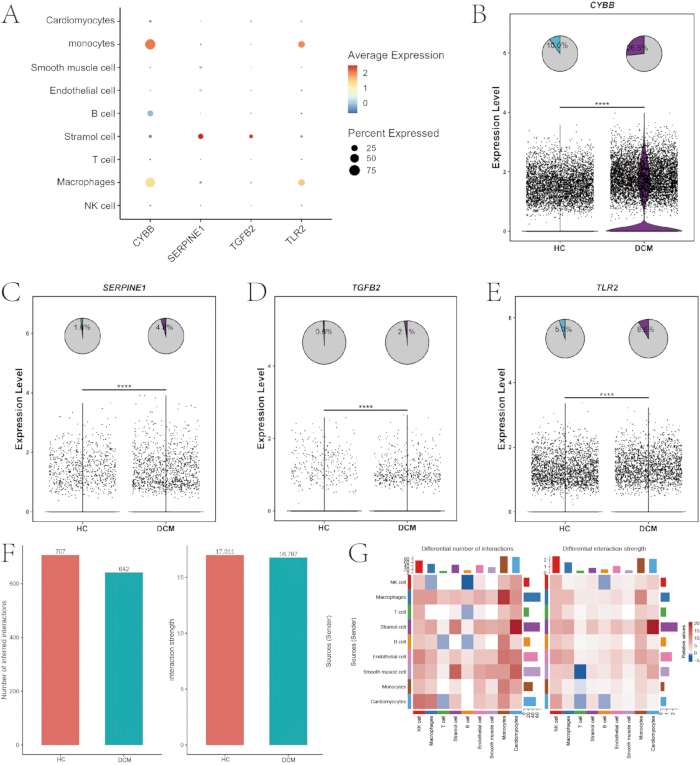
الشكل 7التحقق من الجينات المحورية على مستوى الخلية المفردة وتحليل التواصل بين الخلايا. (A(مخطط فقاعي يوضح تعبير الجينات المحورية الأربعة عبر أنواع الخلايا. (B(مخطط الكمان لتعبير CYBB في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (كربون) مخطط الكمان لتعبير SERPINE1 في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (د(مخطط الكمان لتعبير TGFB2 في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (هـمخطط كمانبياني (Violin plot) للتعبير عن مستقبل TLR2 في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة السليمة (HC).ف) مخطط شريطي يوضح عدد وقوة التفاعلات الخلوية-الخلوية الإجمالية. (ج) خريطة حرارية توضح التباين في قوة التواصل بين الخلايا بين المجموعات. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحليل تسلل الخلايا المناعية
تم حساب درجات الإثراء لـ 28 مجموعة فرعية من الخلايا المناعية لكل عينة مجمعة باستخدام تحليل إثراء مجموعة الجينات للعينة الواحدة. وقد اختلف وفرة معظم أنواع الخلايا المناعية بشكل ملحوظ بين مجموعتي اعتلال عضلة القلب التوسعي والمجموعة الضابطة السليمة (الشكل 8A).
أُجري بعد ذلك تحليل ارتباط بيرسون لتقييم العلاقة بين تعبير الجينات المحورية ودرجات إثراء الخلايا المناعية. وكان تعبير CYBB مرتبطاً بشكل ملحوظ بوفرة أنواع متعددة من الخلايا المناعية (الشكل 8B). ولوحظت ارتباطات مماثلة لكل من SERPINE1 (الشكل 8C)، و TGFB2 (الشكل 8D)، و TLR2 (الشكل 8E). كما أظهرت الجينات CYBB و SERPINE1 و TLR2 ارتباطات إيجابية مع العديد من مجموعات الخلايا المناعية الفطرية، بما في ذلك الخلايا الوحيدة والبلعميات.
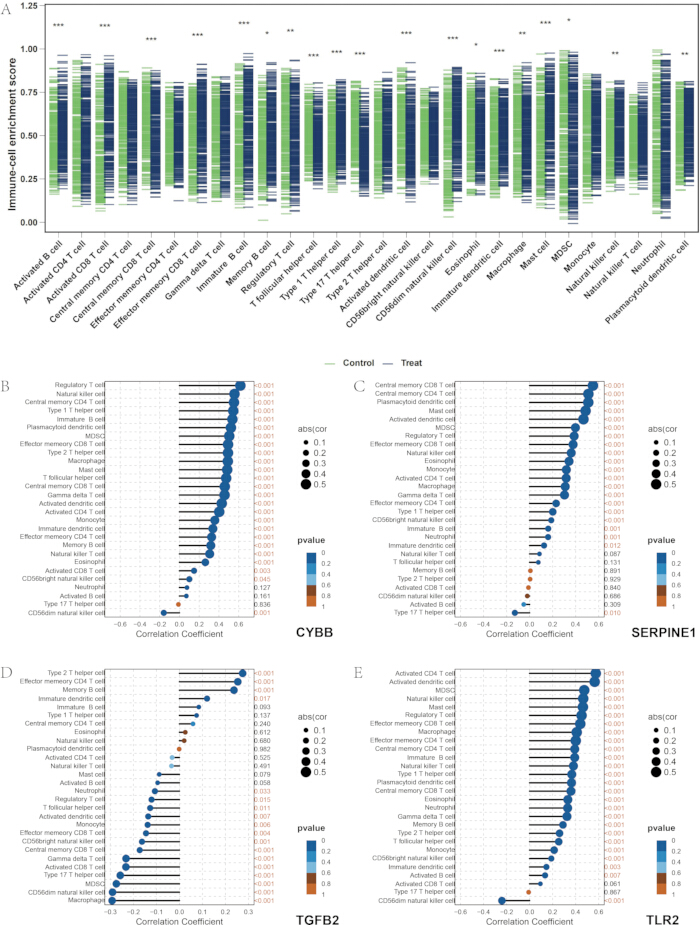
الشكل 8ارتشاح الخلايا المناعية وتحليل الارتباط. (A) مخططات صندوقية لدرجات الإثراء لـ 28 نوعاً من الخلايا المناعية في مجموعتي اعتلال عضلة القلب التوسعي (DCM) والمجموعة الضابطة الصحية (HC). (Bمخطط لوليبوب (Lollipop plot) يوضح الارتباطات بين تعبير CYBB ووفرة الخلايا المناعية.كربونمخطط لوليبوب (Lollipop plot) يوضح الارتباطات بين تعبير SERPINE1 ووفرة الخلايا المناعية.د) مخطط لوليبوب (Lollipop plot) يوضح الارتباطات بين تعبير TGFB2 ووفرة الخلايا المناعية. (هـمخطط المصاصة (Lollipop plot) الذي يوضح الارتباطات بين تعبير TLR2 ووفرة الخلايا المناعية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التصنيف الجزيئي الفرعي لاعتلال عضلة القلب التوسعي
أُجري تجميع توافقي غير خاضع للإشراف على عينات من اعتلال عضلة القلب التوسعي استنادًا إلى ملفات تعبير الجينات المركزية الأربعة. وقد دعمت مصفوفة التجميع التوافقي الفصل عند K = 2 (الشكل 9A). كما أكد مخطط منطقة دلتا أن K = 2 هو العدد الأمثل للمجموعات، مما أدى إلى تقسيم العينات إلى نوعين فرعيين جزيئيين، C1 و C2 (الشكل 9B).
اختلفت مستويات تعبير كل من CYBB و SERPINE1 و TLR2 بشكل ملحوظ بين النوعين الفرعيين (الشكل 9C). كما اختلف وفرة المجموعات الفرعية المتعددة للخلايا المناعية بين الأنواع الفرعية (الشكل 9D). وأظهر تحليل تباين مجموعة الجينات تفعيلًا نسبيًا لمسار إشارات عامل نمو البطانة الوعائية في النوع الفرعي C1، بينما كان تخليق أحماض الصفراء الأولية وتخليق الجليكوسفينجوليبيد أكثر ثراءً في النوع الفرعي C2 (الشكل 9E). وأظهر تحليل المكونات الرئيسية انفصالاً بين العينات المخصصة للنوعين الفرعيين (الشكل 9F).
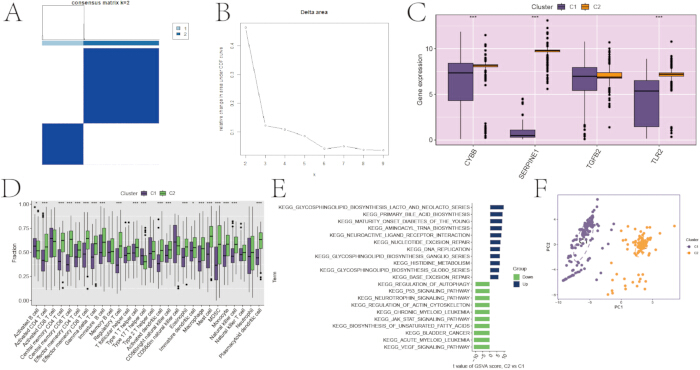
الشكل 9التجميع التوافقي للتنميط الفرعي الجزيئي لاعتلال عضلة القلب التوسعي. (Aمصفوفة التجميع التوافقي عند K = 2.B(مخطط منطقة دلتا المستخدم لتحديد العدد الأمثل للعناقيد.)ج) مخططات صندوقية للتعبير الجيني للجينات المحورية في النمطين الجزيئيين الفرعيين. (د) مخططات صندوقية لوفرة الخلايا المناعية في النمطين الجزيئيين الفرعيين. (هـخريطة حرارية للمسارات المخصبة تفاضلياً في موسوعة كيوتو للجينات والجينومات (KEGG) بين النوعين الجزيئيين الفرعيين.فمخطط تحليل المكونات الرئيسية يوضح الانفصال بين النوعين الجزيئيين الفرعيين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
In vivo التحقق في نموذج فأر مصاب باعتلال عضلة القلب التوسعي
استُخدمت الفئران المعدلة وراثياً CTNTR141W التي تظهر نمطاً ظاهرياً عفوياً لاعتلال عضلة القلب التوسعي لغرض التحقق in vivo. ومقارنة بالفئران الضابطة من النوع البري C57BL/6J المتوافقة في العمر، أظهرت الفئران المعدلة وراثياً زيادة ملحوظة في قطر نهاية الانبساط للبطين الأيسر وانخفاضاً في الكسر القذفي للبطين الأيسر، وهو ما يتفق مع توسع البطين والقصور الانقباضي (الشكل 10A).
تم استخلاص البروتين الكلي من أنسجة عضلة البطين الأيسر، وقِيست تركيزات البروتينات الأربعة التي تشفرها الجينات المحورية بواسطة مقايسة الممتز المناعي المرتبط بالإنزيم (ELISA) بعد تسوية البروتين الكلي بناءً على حمض البيسينكونينيك. أُجريت جميع المقاييس في مكررات ثنائية. كانت منحنيات القياس ذات معاملات ارتباط (R2) ≥ 0.9، وكانت معاملات التباين بين الآبار المكررة أقل من 10%. تم تقييم الدلالة الإحصائية بين مجموعتي السيطرة واعتلال عضلة القلب التوسعي (DCM) باستخدام اختبار t لستودنت أو اختبار t لويلش، وذلك اعتماداً على تساوي التباينات الذي تم تقييمه بواسطة اختبار F (تم التأكد من التوزيع الطبيعي بواسطة اختبار شابيرو-ويلك). ارتفعت مستويات بروتين عضلة القلب المقابلة لجميع الجينات المحورية الأربعة بشكل ملحوظ في فئران اعتلال عضلة القلب التوسعي (DCM) مقارنة بمجموعة السيطرة (الشكل 10B). وللتحقق من نتائج ELISA، تم تضمين 3 مكررات بيولوجية (فئران فردية) في كل مجموعة. وللتحقق من نتائج ELISA، تم تضمين ثلاثة مكررات بيولوجية مستقلة لكل مجموعة. يجب اعتبار هذه النتائج أولية وتتطلب تأكيداً في مجموعة أكبر من العينات.
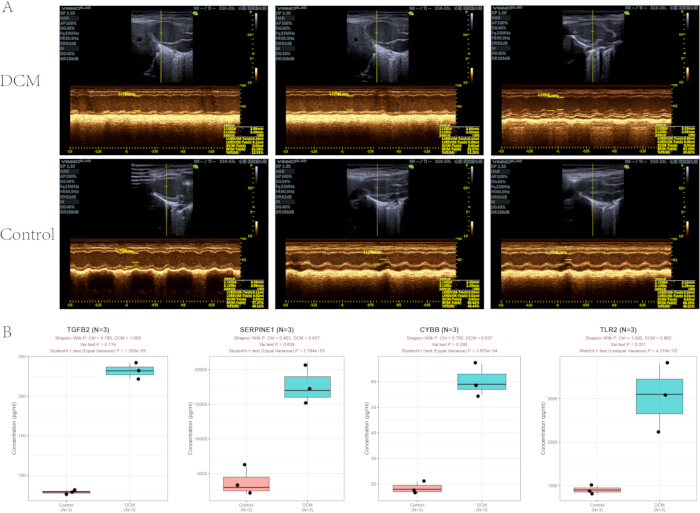
الشكل 10: داخل الكائن الحي التحقق من الصحة في نموذج فأر CTNTR141W المعدل وراثياً والمصاب باعتلال عضلة القلب التوسعي. (A( صور تخطيط صدى القلب تمثيلية بوضع M-mode للفئران المعدلة وراثياً المصابة باعتلال عضلة القلب التوسعي من سلالة CTNTR141W وفئران المجموعات الضابطة من النوع البري. (Bتحديد كمي بواسطة مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA) لأربعة بروتينات مشتقة من جينات مركزية في أنسجة عضلة البطين الأيسر لدى الفئران. تعرض مخططات الصندوق والشوارب (Box-and-whisker plots) تركيزات البروتين لمجموعتي الضابطة (Control) واعتلال عضلة القلب التوسعي (DCM) (العدد = 3 مكررات بيولوجية لكل مجموعة). في كل مخطط صندوقي: يشير الخط الأفقي المتصل داخل الصندوق إلى القيمة الوسيطة؛ وتمثل الحدود العليا والسفلى للصندوق المئين 75 والمئين 25 (المدى الربيعي، IQR)؛ وتمتد الشوارب العليا والسفلى إلى أقصى وأدنى نقاط بيانات غير شاذة ضمن نطاق 1.5 × المدى الربيعي؛ بينما تشير النقاط السوداء المتصلة الفردية إلى مكررات بيولوجية مستقلة من حيوانات منفردة. يشير المحور الصادي إلى التركيز المطلق للبروتين: بيكوغرام/مل لبروتيني TGFB2 وCYBB، ونانوغرام/مل لبروتيني TLR2 وSERPINE1. أُجريت المقارنات الإحصائية بين المجموعتين باستخدام اختبار t للطلاب (للتباين المتساوي) أو اختبار t لويلش (للتباين غير المتساوي)، مع التحقق من التوزيع الطبيعي بواسطة اختبار شابيرو-ويلك، وتقييم تجانس التباين بواسطة اختبار F. بيان القصور: تعد نتائج مقايسة ELISA التي تم الحصول عليها من n = 3 مكررات نتائج استكشافية أولية، ويتطلب الأمر التحقق من صحتها مستقبلاً باستخدام حجم عينة أكبر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
توفر البيانات:
إن مجموعات البيانات الست الخاصة بالنسخ المتعدد (bulk transcriptomic) ومجموعة بيانات تسلسل الحمض النووي الريبي أحادية الخلية (single-cell RNA sequencing) التي تم تحليلها في هذه الدراسة متاحة للعامة في قاعدة بيانات Gene Expression Omnibus تحت أرقام الوصول GSE5406 و GSE4295 و GSE5738 و GSE7962 و GSE16250 و GSE141910 و GSE145154. وقد شمل التحليل أحادي الخلية العينات GSM4307515 و GSM4307516 و GSM4307520 و GSM4307521 من GSE145154. أما جميع البيانات الأخرى التي تم إنتاجها أو تحليلها خلال هذه الدراسة، بالإضافة إلى الكود الحسابي، فهي مدرجة في هذا المقال المنشور وملفات المعلومات التكميلية الخاصة به. وبالتحديد، يحتوي الملف التكميلي 1 على القوائم الكاملة للجينات المرتبطة بالشيخوخة والميتوكوندريا، والبصمة المناعية المكونة من 28 خلية، وسكربتات التحليل المخصصة، ومصفوفات بيانات النسخ المعيرة، والبيانات المصدرية لمقايسات ELISA، والبيانات المصدرية الخام التي تستند إليها جميع أشكال المخططات في المخطوطة.
الملف التكميلي 1: مجموعات الجينات المرتبطة بالشيخوخة والميتوكوندريا، والبصمات المناعية، ونصوص التحليل البرمجية، وبيانات النسخ المتماثلة، والبيانات المصدرية للأشكال. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
جمع سير العمل المتكامل متعدد الطبقات بين التحليل الميتا-ترانسكريبتومي الشامل (bulk transcriptomic meta-analysis)، وبناء شبكة التعبير الجيني المشترك المرجحة، والتعلم الآلي التجميعي، والتحقق الترانسكريبتومي أحادي الخلية، والتحقق من خلال نماذج حيوانية in vivo. تم تحديد أربعة جينات مركزية مرتبطة بالشيخوخة والميتوكوندريا وهي CYBB وSERPINE1 وTGFB2 وTLR2 كعلامات بيولوجية تشخيصية مرشحة لاعتلال عضلة القلب التوسعي (DCM). وقد أدى دمج ست مجموعات بيانات ترانسكريبتومية مستقلة للبطين الأيسر من مستودع Gene Expression Omnibus، بما في ذلك منصات المصفوفات الدقيقة (microarray) وتسلسل الحمض النووي الريبي (RNA-sequencing)، إلى تقليل الانحياز المرتبط بمجموعة البيانات الواحدة وزيادة الأساس الإحصائي للتحليل43,44,45. كما أتاح تحليل شبكة التعبير الجيني المشترك المرجحة، مقترناً بمجموعات جينية محددة مسبقاً مرتبطة بالشيخوخة والميتوكوندريا، تحديد الوحدات الوظيفية المرتبطة بالسمات بدلاً من الاعتماد على تحليل التعبير التفاضلي وحده46. وساهم التعلم الآلي التجميعي في تقليل الانحياز الخاص بالخوارزميات المرتبط بطرق اختيار الميزات الفردية47,48، بينما قام تحليل SHapley Additive exPlanations بكميّة مساهمة كل جين مركزي في تنبؤات النموذج49. وأدى التحقق عبر ترانسكريبتومات عضلة القلب الشاملة، والترانسكريبتومات أحادية الخلية، ونموذج فأر معدل وراثياً، إلى توصيف إضافي للتوزيع الخلوي ومستويات البروتين في عضلة القلب للجينات المختارة50.
كان تصحيح الدفعات خطوة حاسمة في التحليل المتكامل لأن التباين المتبقي الخاص بمجموعة البيانات قد يؤثر على تحليل التعبير التفاضلي والارتباطات بين الوحدات والسمات. ولذلك، تم إدراج مصدر مجموعة البيانات ومنصة الكشف كعوامل دفعات في نموذج ComBat. ومن شأن حدوث تكتل متبقٍ يعتمد على مجموعة البيانات في مخططات تحليل المكونات الرئيسية أن يشير إلى تصحيح غير مكتمل وتحيز منهجي محتمل44. كما كانت قوة العتبة المرنة مهمة لبناء شبكة التعبير الجيني المشترك الموزونة. وقد تم اختيار القيمة الدنيا التي أنتجت مؤشر ملاءمة لطوبولوجيا خالية من القياس بقيمة R2 > 0.9، مما أدى إلى β = 5. وقد تؤدي القيمة الأدنى إلى إنتاج وحدات مجزأة أو غير مفيدة وظيفياً، بينما قد تؤدي القيمة الأعلى إلى إضعاف الترابط الجيني وتقليل القوة الإحصائية لتحليل الارتباط بين الوحدة والسمة46. كما تم تكييف عتبات مراقبة الجودة للخلايا المفردة لتناسب أنسجة القلب لأن الخلايا العضلية القلبية تتميز بنشاط أيضي عالٍ. وتم تنفيذ استراتيجية تصفية صارمة مع حد قطع لنسبة الجينات الميتوكوندرية أقل من 25% ونطاق جينات مكتشفة يتراوح بين 200–6,000 لإزالة الخلايا المتمزقة ومنخفضة الجودة مع الاحتفاظ بالخلايا العضلية القلبية50. واستُخدمت بذرة عشوائية ثابتة، set. seed(12345)، لتقسيم مجموعة البيانات، وتدريب النموذج، والتحقق المتقاطع لتقليل التباين عبر تحليلات التعلم الآلي المتكررة47.
كان تأكيد النمط الجيني، وتوحيد ظروف الإيواء، واتساق قياسات تخطيط صدى القلب عوامل مهمة للحفاظ على الاستقرار المظهري في التجارب الحيوانية. تطور الفئران المعدلة وراثياً من سلالة CTNTR141W تمدداً في البطين الأيسر واختلالاً في الوظيفة الانقباضية بعد فترة التأقلم والتغذية المحددة51. ويعد التحقق من النمط الجيني قبل تقسيم المجموعات ضرورياً لاستبعاد الحيوانات غير المعدلة وراثياً ومنع التصنيف الخاطئ للمظهر الظاهري. يجب الحصول على قياسات تخطيط صدى القلب بشكل متسق عند مستوى العضلات الحليمية للبطين الأيسر، مع حساب متوسط القياسات عبر ثلاث دورات قلبية مستقرة متتالية. وقد يؤدي التباين في موضع التصوير أو عمق التخدير إلى زيادة التباين في قياسات كسر قذف البطين الأيسر51. كما تم تقييم جودة مقايسة الممتز المترابط مناعياً للإنزيمات باستخدام معاملات ارتباط المنحنى القياسي، R2 ≥ 0.99، ومعاملات تباين < 10% بين الآبار المكررة. ومن شأن ضعف خطية المنحنى القياسي أو عدم اتساق القياسات المكررة أن يؤدي إلى حدوث خطأ منهجي في تقديرات تركيز البروتين.
قد تظهر عدة مشكلات تحليلية أثناء تنفيذ سير العمل. قد يعكس استمرار انفصال الدفعات بعد تصحيح ComBat وجود علاقة خطية بين متغيرات الدفعة والعوامل السريرية، أو عدم كفاية تصفية الجينات ذات التعبير المنخفض، أو تباين تقني غير منمذج. يمكن إدراج المتغيرات السريرية المصاحبة مثل العمر والجنس كمتغيرات محمية عند توفرها، كما يمكن إزالة الجينات التي يكون تعبيرها صفراً في أكثر من 70% من العينات لتقليل الضجيج44. ويمكن النظر في إجراء تصحيح تكميلي باستخدام removeBatchEffect عند بقاء انفصال متبقٍ. قد يتطلب العدد المرتفع أو المنخفض بشكل غير متوقع من الجينات ذات التعبير التفاضلي تقييم تباين العينات، والتقييس، والقيم المتطرفة، واختيار العتبة27. أما الارتباطات المنخفضة بين الوحدات والسمات فيمكن معالجتها من خلال إعادة تقييم عتبة التباين، وقوة العتبة الناعمة، وقيم السمات المتطرفة. وقد يؤدي التوسع من 5,000 إلى 7,500 من أكثر الجينات تباينًا أو استبدال تحليل إثراء مجموعة الجينات للعينة الواحدة بتحليل تباين مجموعة الجينات إلى تحسين اكتشاف الوحدات46. وقد تتطلب العقد المعزولة المفرطة في شبكة التفاعل بين البروتينات ضبط عتبة الثقة في STRING أو توسيع مجموعة الجينات المرشحة30. كما قد يعكس ضعف أداء تعلم الآلة وجود اختلافات توزيعية بين مجموعات التدريب والتحقق، أو تكرار الميزات، أو عدم توازن المجموعات. ويمكن أن يؤدي أخذ العينات الطبقية، أو تقليل الميزات المكررة، أو زيادة أخذ عينات الفئة الأقلية إلى تقليل هذه التأثيرات47. وقد يتطلب التجميع الغامض للخلايا المفردة إعادة تقييم تصحيح Harmony، واختيار المكونات الرئيسية، وتوصيف الجينات الواسمة50.
يجب مراعاة عدة قيود في هذه الدراسة. فقد تم الحصول على مجموعات البيانات النسخية (transcriptomic datasets) بأثر رجعي من مستودعات عامة، ولم يكن من الممكن التحكم في تصميمات الدراسات الأصلية والعوامل السريرية المربكة. كما كانت التعليقات السريرية غير مكتملة عبر مجموعات البيانات، وافتقرت معظمها إلى معلومات مفصلة حول المسببات، والتاريخ الدوائي، وعمر المريض، والنتائج طويلة المدى. وقد حالت هذه القيود دون تقييم الارتباطات بين الجينات المختارة والإنذار المرضي، أو الاستجابة للعلاج، أو الشيخوخة الزمنية52. وقد يظل هناك تباين تقني متبقٍ رغم إجراء تصحيح الدفعات (batch correction). استند التحليل بشكل أساسي إلى تعبير الحمض النووي الريبوزي المرسال (messenger RNA) ولم يتضمن بيانات متكاملة من علم الوراثة فوق الجينية (epigenomics)، أو علم البروتوميات (proteomics)، أو علم الأيض (metabolomics)؛ وبناءً على ذلك، لم يتسنَّ تحديد نشاط البروتين، والتنظيم ما بعد الترجمة، والآليات الأولية. كما تم إدراج مجموعة بيانات واحدة فقط من الخلايا المفردة، مما حد من تقييم التغاير الخلوي عبر مسببات اعتلال عضلة القلب التوسعي (DCM)50. ويمثل النموذج المعدل وراثياً CTNTR141W بشكل أساسي اعتلال عضلة القلب التوسعي الوراثي المرتبط بطفرة في تروبونين T القلبي، وقد لا يحاكي الأشكال مجهولة السبب أو الفيروسية أو الإقفارية للمرض51. كما تحد الاختلافات بين الأنواع بين الفئران والبشر من الترجمة السريرية المباشرة. وقد اقتصر التحقق من مستوى البروتين على أنسجة عضلة القلب من الفئران، ولم يتم إجراء دراسات على مجموعات سريرية كبيرة أو مقارنات مع المؤشرات الحيوية المعتمدة. كما أن الجينات المحورية الأربعة ليست خاصة باعتلال عضلة القلب التوسعي، وقد تكون متغيرة أيضاً في حالات قلبية وعائية أو التهابية أخرى. بالإضافة إلى ذلك، استند اختيار الجينات المرشحة إلى مجموعات جينية محددة مسبقاً مرتبطة بالشيخوخة والميتوكوندريا. وقد تؤدي هذه الاستراتيجية القائمة على الفرضيات إلى استبعاد الجينات التي تقع خارج المجموعات المرجعية المختارة، بينما قد يؤدي التقاطع بين خوارزميات تعلم الآلة الثلاث إلى إغفال الجينات التي تم تحديدها بواسطة طريقة واحدة فقط48.
يمكن للإطار التحليلي أن يدعم عمليات التصنيف الفرعي الجزيئي، والتحقق من صحة المؤشرات الحيوية، ودراسات الأوميكس المتعددة في اعتلال عضلة القلب التوسعي (DCM) في المستقبل. كما يمكن تقييم لوحة الجينات الأربعة في مجموعات مستقلة من الدم المحيطي أو عضلة القلب قبل تقييمها كأداة تشخيصية أو أداة للتصنيف الفرعي. وقد أظهر النوعان الفرعيان C1 وC2 ملفات تعريف مختلفة للمسارات المناعية والأيضية، مما يوفر أساساً للتحقق اللاحق من الخصائص البيولوجية الخاصة بكل نوع فرعي15. كما يمكن فحص الجينات المختارة في دراسات الالتحام الجزيئي والدراسات الخلوية والوظيفية. ويرتبط TLR2 وCYBB بنقل الإشارات الالتهابية وإنتاج أنواع الأكسجين التفاعلية، بينما يرتبط TGFB2 وSERPINE1 بالتليف وإعادة تشكيل القلب53. وقد يساعد التكامل مع بيانات البروتومات والميتابولوميات والجينوميات فوق الجينية، ودراسات الارتباط على مستوى الجينوم، والعشوائية المندلية، في تقييم العلاقات التنظيمية والارتباطات السببية المحتملة54. كما يمكن تكييف سير العمل ليتناسب مع الدراسات النسخية لاعتلال عضلة القلب الضخامي، واعتلال عضلة القلب الإقفاري، وفشل القلب عن طريق استبدال مجموعات البيانات الخاصة بكل مرض ومجموعات الجينات المرجعية45. وقد يوفر الدم المستقبلي للمقاييس أحادية الخلية لتسلسل الكروماتين المتاح للترانسبوزاز والنسخيات المكانية معلومات إضافية حول التنظيم الخلوي والتعبير المكاني. وكان الإثراء الملاحظ للتواقيع المرتبطة بالشيخوخة في البلاعم والتواقيع الميتوكوندرية في الخلايا العضلية القلبية متسقاً مع التقارير السابقة حول العمليات الالتهابية والميتوكوندرية في أمراض القلب55,56,57.
ثمة عدة قيود في هذه الدراسة ينبغي الإقرار بها. ومن الملاحظ أن أطقم ELISA التجارية المستخدمة في التقدير الكمي للبروتين قد تم اعتمادها رسميًا للكشف عن البروتينات المستهدفة في عينات المصل. وفي الدراسة الحالية، تم اعتماد نواتج تحلل أنسجة عضلة القلب كقالب للكشف بدلاً من المصل. ورغم التطبيق الصارم لإجراءات موحدة في المعالجة المسبقة للعينات والعمليات التجريبية طوال فترة المقايسة لضمان موثوقية البيانات التجريبية وقابليتها للمقارنة، فإن غياب الاعتماد الرسمي من الشركة المصنعة لأطقم ELISA هذه في عينات نواتج تحلل أنسجة عضلة القلب قد يؤدي إلى انحرافات طفيفة محتملة في النتائج الكمية للبروتين. وبناءً على ذلك، فإن تطبيق أطقم ELISA المخصصة للمصل على نواتج تحلل أنسجة عضلة القلب يشكل قيدًا منهجيًا في هذه الدراسة.
الإفصاحات
يصرح المؤلف بعدم وجود تضارب في المصالح.
شكر وتقدير
نُقر بتقديرنا للبيانات المتاحة للعموم والمقدمة من خلال قاعدة بيانات Gene Expression Omnibus. كما نتوجه بالشكر للمراجعين والمحررين على ملاحظاتهم البناءة حول المخطوطة. تم دعم هذا العمل من قبل المشروع البحثي العلمي على مستوى الدائرة الإقليمية (منحة رقم 2021JDZX2026)، بعنوان "آلية تركيبة Yiqi Huoxue في تخفيف إعادة تشكيل الأوعية الدموية التصلبية عبر التنظيم الالتهابي بوساطة KLF2-Nrf2".
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| هلام الموجات فوق الصوتية Aquasonic Clear | Parker Laboratories, Inc. | Mar-34 | تُستخدم في تصوير صدى القلب للحيوانات الصغيرة. |
| طقم مقايسة بروتين BCA | Thermo Fisher Scientific | 23227 | الكشف عند 562 نانومتر؛ المدى، 20–2,000 µg/mL؛ تُستخدم للتقدير الكمي لإجمالي البروتين في نواتج تحلل أنسجة قلب الفئران. |
| قاعدة بيانات CellAge | الموارد الجينومية لشيخوخة الإنسان | https://genomics.senescence.info/cells/ | مصدر بصمات جينية مرتبطة بالشيخوخة. |
| CytoHubba، إضافة لبرنامج Cytoscape | متجر تطبيقات Cytoscape | الإصدار 0.1 | تُستخدم لتقييم طوبولوجيا العقد في شبكات التفاعل بين البروتينات. |
| سيتوسكيب (Cytoscape) | اتحاد سيتوسكيب (Cytoscape Consortium) | الإصدار 3.9.1 | تُستخدم لتصور شبكات التفاعل بين البروتينات. |
| قارئ الأطباق الدقيقة كامل الطول الموجي | Thermo Fisher Scientific | Multiskan FC | تُستخدم لقياس الامتصاصية في مقايسات الممتز المنيعي المرتبط بالإنزيم (ELISA). |
| مستودع التعبير الجيني (Gene Expression Omnibus) | المركز الوطني لمعلومات التقانة الحيوية | https://www.ncbi.nlm.nih.gov/geo/ | مستودع عام استُخدم للحصول على مجموعات بيانات النسخ. |
| GeneCards | معهد وايزمان للعلوم | https://www.genecards.org/ | مصدر مجموعات الجينات المرتبطة بالميتوكوندريا. |
| مزيج مثبطات البروتياز والفوسفاتاز Halt، 100×، خالية من EDTA | Thermo Fisher Scientific | 78441 | يُحفظ في 4 °C؛ تضاف إلى منظم RIPA عند 10 µL/mL مباشرةً قبل الاستخدام. |
| نيتروجين سائل | مورد الغازات المختبرية المحلي | غير قابل للتطبيق | تُستخدم للتجميد السريع لأنسجة عضلة القلب. |
| فئران C57BL/6J ذكور، من درجة SPF، 6–عمر 8 أسابيع، 25 ± ٢ جم | شركة بكين فايتال ريفر لتكنولوجيا حيوانات المختبرات المحدودة | غير قابل للتطبيق | رخصة إنتاج حيواني رقم SCXK (Jing) 2021-0006؛ استُخدمت كمجموعات ضابطة طبيعية. |
| فئران ذكورية معدلة وراثياً من سلالة CTNTR141W مصابة باعتلال عضلة القلب التوسعي (DCM) ومن درجة SPF، عدد 6–عمر 8 أسابيع، 25 ± ٢ جم | معهد علوم حيوانات المختبر، الأكاديمية الصينية للعلوم الطبية | غير قابل للتطبيق | رخصة إنتاج الحيوانات رقم SCXK (Jing) 2021-0065؛ استُخدمت كنموذج لتسرّب اعتلال عضلة القلب التوسعي التلقائي (spontaneous DCM). |
| MCODE، إضافة Cytoscape | متجر تطبيقات Cytoscape | الإصدار 2.0.2 | تُستخدم لتحديد الشبكات الفرعية الوظيفية الأساسية في شبكات التآثر بين البروتينات. |
| طقم مقايسة الممتز المجهري للإنزيم المرتبط المناعي (ELISA) لبروتين CYBB في الفئران | Biogradetech | A-QEK09250-96wells | استُخدم في هذه الدراسة لقياس CYBB في نواتج تحلل أنسجة عضلة القلب للفأر. |
| طقم مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA) لبروتين PAI-1 في الفئران | EK-BIO | ML30970 | استُخدم في هذه الدراسة لقياس PAI-1، وهو البروتين الذي يشفر له جين SERPINE1، في نواتج تحلل أنسجة عضلة القلب لدى الفئران. |
| عامل النمو التحويلي بيتا في الفئران (Mouse TGF-β)βطقم مقايسة الممتز المائية المرتبط بالإنزيم (ELISA) 2 | ElaBoX | SEKM-0036 | استُخدم في هذه الدراسة لقياس TGF-β2 في نواتج تحلل أنسجة عضلة القلب لدى الفئران. |
| طقم مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA) لمستقبل TLR-2 في الفئران | Solarbio | SEKM-0163 | استُخدم في هذه الدراسة لقياس TLR-2 في نواتج تحلل أنسجة عضلة القلب للفئران. |
| محلول ملحي منظم بالفوسفات، درجة الحموضة 7.4، خالٍ من الكالسيوم والمغنيسيوم | الصناعات البيولوجية | 02-024-1ACS | معقم 1× محلول؛ يُحفظ في 4 °C؛ تُستخدم لغسل الأنسجة والتخفيف. |
| حزمة R: caret | CRAN | الإصدار 6.0-94 | تُستخدم في عملية حذف الميزات المتكرر باستخدام آلة ناقلات الدعم. |
| حزمة R: CellChat | مطورو CellChat | الإصدار 1.6.1 | تُستخدم لاستنتاج التواصل بين الخلايا من بيانات تسلسل الحمض النووي الريبي أحادي الخلية (single-cell RNA sequencing). |
| حزمة R: clusterProfiler | Bioconductor | الإصدار 4.8.3 | تُستخدم لتحليل الإثراء الوظيفي. |
| حزمة R: ConsensusClusterPlus | Bioconductor | الإصدار 1.64.0 | تُستخدم للتجميع التوافقي غير الخاضع للإشراف. |
| حزمة R: edgeR | بيوكوندوكتور (Bioconductor) | الإصدار 3.42.4 | تُستخدم لمعايرة بيانات تسلسل الحمض النووي الريبوزي (RNA) باستخدام طريقة المتوسط المقلّم لقيم M (TMM). |
| حزمة لغة R: GEOquery | Bioconductor | الإصدار 2.68.0 | تُستخدم لتنزيل البيانات من مستودع التعبير الجيني (Gene Expression Omnibus). |
| حزمة R: glmnet | شبكة مستودع آر إكس الشاملة (CRAN) | الإصدار 4.1-8 | تُستخدم في انحدار لوجستي باستخدام مشغل تقليص وانتقاء مطلق أدنى (LASSO). |
| حزمة R: limma | Bioconductor | الإصدار 3.56.2 | تُستخدم في تحليل التعبير التفاضلي والنمذجة الإحصائية. |
| حزمة R: pROC | شبكة أرشيف R الشاملة (CRAN) | الإصدار 1.18.5 | تُستخدم لتحليل منحنى خصائص تشغيل المستقبل. |
| حزمة R: randomForest | شبكة مستودع R الشاملة (CRAN) | الإصدار 4.7-1.2 | تُستخدم في تعلم الآلة بالغابات العشوائية. |
| حزمة R: Seurat | شبكة أرشيف R الشاملة (CRAN) | الإصدار 5.0.1 | تُستخدم لتحليل بيانات تسلسل الحمض النووي الريبوزي (RNA) أحادي الخلية. |
| حزمة R: SingleR | Bioconductor | الإصدار 2.2.0 | تُستخدم للتوصيف التلقائي لأنواع الخلايا. |
| حزمة R: sva | Bioconductor | الإصدار 3.48.0 | تُستخدم لتصحيح تأثير الدفعة (batch-effect) باستخدام ComBat. |
| جهاز طرد مركزي مبرد | Sigma-Aldrich | SIGMA 3-K | تُستخدم لطرد مركبات نواتج تحلل أنسجة عضلة القلب مركزياً. |
| منظم تحلل واستخلاص RIPA | Thermo Fisher Scientific | 89900 | جاهز للاستخدام 1× محلول؛ يُحفظ في 4 °C؛ مع تدعيمها بمثبطات البروتياز والفوسفاتاز قبل الاستخدام. |
| نظام التصوير بالموجات فوق الصوتية للحيوانات الصغيرة | شركة VINNO Technology Co., Ltd. | VINN06LAB | تُستخدم للتقييم بالموجات فوق الصوتية للقلب (إيكوكارديوغرافيا) لوظائف القلب. |
| بنتوباربیتال الصوديوم | شركة Sinopharm للكواشف الكيميائية | 20040428 | تُحضّر كمحلول بتركيز 1%، أي 10 ملغم/مل، في محلول ملحي معقم؛ وتُستخدم للتخدير داخل الصفاق بجرعة 30 ملغم/كغم. |
| قاعدة بيانات STRING | ائتلاف STRING | الإصدار 11.5 | تُستخدم لبناء شبكة التفاعلات البروتينية-البروتينية. |
| جهاز تجنيس الأنسجة TGrinder H24 | TIANGEN | OSE-TH-01 | تُستخدم لتجنيس أنسجة عضلة القلب للفئران في محلول RIPA المنظم بسرعة 6.0 م/ث لمدة 30–60 ثانية على 2–٣ دورات. |
| منصة حيوانات ذات تنظيم حراري/طاولة عمليات مسخنة للحيوانات الصغيرة | شركة شنغهاي يويان للأجهزة العلمية المحدودة | T-30350 | تُستخدم للحفاظ على الفئران في 37 °C أثناء تخطيط صدى القلب؛ نطاق التشغيل، من درجة حرارة الغرفة إلى 50 °C. |
المراجع
- Pinto YM et al. Proposal for a revised definition of dilated cardiomyopathy, hypokinetic non-dilated cardiomyopathy, and its implications for clinical practice: a position statement of the ESC working group on myocardial and pericardial diseases. Eur Heart J. 2016;37(23):1850-1858. https://doi.org/10.1093/eurheartj/ehv727
- Newman NA, Burke MA. Dilated Cardiomyopathy: A Genetic Journey from Past to Future. Int J Mol Sci. 2024;25(21):11460. https://doi.org/10.3390/ijms252111460
- Mishra B et al. Tumour necrosis factor-alpha promoter polymorphism and its association with viral dilated cardiomyopathy in Indian population: a pilot study. Indian J Med Microbiol. 2015;33(1):16–20. https://doi.org/10.4103/0255-0857.148368
- Frustaci A et al. Oxidative myocardial damage in human cocaine-related cardiomyopathy. Eur J Heart Fail. 2015;17(3):283-290. https://doi.org/10.1002/ejhf.219
- Ni B et al. The role of β-catenin in cardiac diseases. Front Pharmacol. 2023;14:1157043. https://doi.org/10.3389/fphar.2023.1157043
- Kuwahara K et al. TRPC6 fulfills a calcineurin signaling circuit during pathologic cardiac remodeling. J Clin Invest. 2006;116(12):3114-3126. https://doi.org/10.1172/JCI27702
- He SL et al. Mitochondrial-related gene expression profiles suggest an important role of PGC-1alpha in the compensatory mechanism of endemic dilated cardiomyopathy. Exp Cell Res. 2013;319(17):2604–2616. https://doi.org/10.1016/j.yexcr.2013.07.017
- Luczak ED et al. Mitochondrial CaMKII causes adverse metabolic reprogramming and dilated cardiomyopathy. Nat Commun. 2020;11(1):4416. https://doi.org/10.1038/s41467-020-18165-6
- Li E et al. BMAL1 regulates mitochondrial fission and mitophagy through mitochondrial protein BNIP3 and is critical in the development of dilated cardiomyopathy. Protein Cell. 2020;11(9):661–679. https://doi.org/10.1007/s13238-020-00713-1
- Alila-Fersi O et al. First description of a novel mitochondrial mutation in the MT-TI gene associated with multiple mitochondrial DNA deletion and depletion in family with severe dilated mitochondrial cardiomyopathy. Biochem Biophys Res Commun. 2018;497(4):1049-1054. https://doi.org/10.1016/j.bbrc.2018.02.162
- Ramaccini D et al. Mitochondrial Function and Dysfunction in Dilated Cardiomyopathy. Front Cell Dev Biol. 2020;8:624216. https://doi.org/10.3389/fcell.2020.624216
- Yang J et al. Stem cells in the treatment of myocardial injury-induced cardiomyopathy: mechanisms and efficient utilization strategies. Front Pharmacol. 2025;16:1600604. https://doi.org/10.3389/fphar.2025.1600604
- Van Linthout S et al. State of the art and perspectives of gene therapy in heart failure. A scientific statement of the Heart Failure Association of the ESC, the ESC Council on Cardiovascular Genomics and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2025;27(1):5–25. https://doi.org/10.1002/ejhf.3516
- Alimadadi A, Munroe PB, Joe B, Cheng X. Meta-Analysis of Dilated Cardiomyopathy Using Cardiac RNA-Seq Transcriptomic Datasets. Genes (Basel). 2020;11(1):60. https://doi.org/10.3390/genes11010060
- Verdonschot J et al. Clustering of Cardiac Transcriptome Profiles Reveals Unique Subgroups of Dilated Cardiomyopathy Patients. JACC Basic Transl Sci. 2023;8(4):406–418. https://doi.org/10.1016/j.jacbts.2022.10.007
- Zhu T et al. Identification and Verification of Feature Biomarkers Associated With Immune Cells in Dilated Cardiomyopathy by Bioinformatics Analysis. Front Genet. 2022;13:874544. https://doi.org/10.3389/fgene.2022.874544
- Li H et al. Identification of Centrosome Duplication-Related Biomarkers in Hypertrophic Cardiomyopathy Through Integrative Multi-Omics, Single-Cell Transcriptomics, and Experimental Validation. J Am Heart Assoc. 2026;15(12):e047416. https://doi.org/10.1161/JAHA.125.047416
- Ni L et al. Dissecting and validation the biomarker of heart failure progression in patients with atherosclerosis by single-cell sequencing, bioinformatics, and machine learning. Front Genet. 2025;16:1587274. https://doi.org/10.3389/fgene.2025.1587274
- Barrett T et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41(Database issue):D991–D995. https://doi.org/10.1093/nar/gks1193
- Davis S, Meltzer PS. GEOquery: a bridge between the Gene Expression Omnibus (GEO) and BioConductor. Bioinformatics. 2007;23(14):1846-1847. https://doi.org/10.1093/bioinformatics/btm254
- Irizarry RA et al. Exploration, normalization, and summaries of high density oligonucleotide array probe level data. Biostatistics. 2003;4(2):249-264. https://doi.org/10.1093/biostatistics/4.2.249
- Robinson MD, McCarthy DJ, Smyth GK. edgeR: a Bioconductor package for differential expression analysis of digital gene expression data. Bioinformatics. 2010;26(1):139–140. https://doi.org/10.1093/bioinformatics/btp616
- Leek JT et al. The sva package for removing batch effects and other unwanted variation in high-throughput experiments. Bioinformatics. 2012;28(6):882–883. https://doi.org/10.1093/bioinformatics/bts034
- Butler A et al. Integrating single-cell transcriptomic data across different conditions, technologies, and species. Nat Biotechnol. 2018;36(5):411-420. https://doi.org/10.1038/nbt.4096
- Korsunsky I et al. Fast, sensitive and accurate integration of single-cell data with Harmony. Nat Methods. 2019;16(12):1289-1296. https://doi.org/10.1038/s51592-019-0619-0
- Aran D et al. Reference-based analysis of lung single-cell sequencing reveals a transitional profibrotic macrophage. Nat Immunol. 2019;20(2):163-172. https://doi.org/10.1038/s41590-018-0276-y
- Ritchie ME et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. https://doi.org/10.1093/nar/gkv007
- Barbie DA et al. Systematic RNA interference reveals that oncogenic KRAS-driven cancers require TBK1. Nature. 2009;462(7269):108-112. https://doi.org/10.1038/nature08460
- Yu G et al. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284-287. https://doi.org/10.1089/omi.2011.0118
- Szklarczyk D et al. STRING v11: protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607–D613. https://doi.org/10.1093/nar/gky1131
- Shannon P et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-2504. https://doi.org/10.1101/gr.1239303
- Chin CH et al. cytoHubba: identifying hub objects and sub-networks from complex interactome. BMC Syst Biol. 2014;8(Suppl 4):S11. https://doi.org/10.1186/1752-0509-8-S4-S11
- Bader GD, Hogue CW. An automated method for finding molecular complexes in large protein interaction networks. BMC Bioinformatics. 2003;4:2. https://doi.org/10.1186/1471-2105-4-2
- Friedman J, Hastie T, Tibshirani R. Regularization Paths for Generalized Linear Models via Coordinate Descent. J Stat Softw. 2010;33(1):1-22. https://doi.org/10.18637/jss.v033.i01
- Touw WG et al. Data mining in the Life Sciences with Random Forest: a walk in the park or lost in the jungle. Brief Bioinform. 2013;14(3):315-326. https://doi.org/10.1093/bib/bbs034
- Chicco D. Ten quick tips for machine learning in computational biology. BioData Min. 2017;10:35. https://doi.org/10.1186/s13040-017-0155-3
- Robin X et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77. https://doi.org/10.1186/1471-2105-12-77
- Lundberg SM et al. From Local Explanations to Global Understanding with Explainable AI for Trees. Nat Mach Intell. 2020;2(1):56-67. https://doi.org/10.1038/s42256-019-0138-9
- Jin S et al. Inference and analysis of cell-cell communication using CellChat. Nat Commun. 2021;12(1):1088. https://doi.org/10.1038/s41467-021-21246-9
- Charoentong P et al. Pan-cancer Immunogenomic Analyses Reveal Genotype-Immunophenotype Relationships and Predictors of Response to Checkpoint Blockade. Cell Rep. 2017;18(1):248–262. https://doi.org/10.1016/j.celrep.2016.12.019
- Wilkerson MD, Hayes DN. ConsensusClusterPlus: a class discovery tool with confidence assessments and item tracking. Bioinformatics. 2010;26(12):1572–1573. https://doi.org/10.1093/bioinformatics/btq170
- Hänzelmann S, Castelo R, Guinney J. GSVA: gene set variation analysis for microarray and RNA-seq data. BMC Bioinformatics. 2013;14:7. https://doi.org/10.1186/1471-2105-14-7
- Zheng Y et al. Exploring Key Genes to Construct a Diagnosis Model of Dilated Cardiomyopathy. Front Cardiovasc Med. 2022;9:865096. https://doi.org/10.3389/fcvm.2022.865096
- Johnson WE, Li C, Rabinovic A. Adjusting batch effects in microarray expression data using empirical Bayes methods. Biostatistics. 2007;8(1):118-127. https://doi.org/10.1093/biostatistics/kxj037
- Koslow M, Mondaca-Ruff D, Xu X. Transcriptome studies of inherited dilated cardiomyopathies. Mamm Genome. 2023;34(2):312-322. https://doi.org/10.1007/s00335-023-09978-z
- Zhang B, Horvath S. A general framework for weighted gene co-expression network analysis. Stat Appl Genet Mol Biol. 2005;4:Article17. https://doi.org/10.2202/1544-6115.1128
- Lin M et al. Machine learning and multi-omics integration: advancing cardiovascular translational research and clinical practice. J Transl Med. 2025;23(1):388. https://doi.org/10.1186/s12967-025-06425-2
- Climente-González H et al. Interpretable machine learning leverages proteomics to improve cardiovascular disease risk prediction and biomarker identification. Commun Med (Lond). 2025;5(1):170. https://doi.org/10.1038/s43856-025-00872-0
- Shah P et al. Predicting cardiovascular risk with hybrid ensemble learning and explainable AI. Sci Rep. 2025;15(1):17927. https://doi.org/10.1038/s41598-025-01650-7
- Chaffin M et al. Single-nucleus profiling of human dilated and hypertrophic cardiomyopathy. Nature. 2022;608(7921):174-180. https://doi.org/10.1038/s41586-022-04817-8
- Juan F et al. The changes of the cardiac structure and function in cTnTR141W transgenic mice. Int J Cardiol. 2008;128(1):83-90. https://doi.org/10.1016/j.ijcard.2008.03.006
- Russell-Hallinan A et al. Single-Cell RNA Sequencing Reveals Cardiac Fibroblast-Specific Transcriptomic Changes in Dilated Cardiomyopathy. Cells. 2024;13(9):752. https://doi.org/10.3390/cells13090752
- Knowlton KU. Dilated Cardiomyopathy. Circulation. 2019;139(20):2339-2341. https://doi.org/10.1161/CIRCULATIONAHA.119.040037
- Smith GD, Ebrahim S. Mendelian randomization: prospects, potentials, and limitations. Int J Epidemiol. 2004;33(1):30-42. https://doi.org/10.1093/ije/dyh132
- Chen R et al. Macrophages in cardiovascular diseases: molecular mechanisms and therapeutic targets. Signal Transduct Target Ther. 2024;9(1):130. https://doi.org/10.1038/s41392-024-01840-1
- Liu R et al. Tead1 is essential for mitochondrial function in cardiomyocytes. Am J Physiol Heart Circ Physiol. 2020;319(1):H89-H99. https://doi.org/10.1152/ajpheart.00732.2019
- Sharma S et al. SOD2 deficiency in cardiomyocytes defines defective mitochondrial bioenergetics as a cause of lethal dilated cardiomyopathy. Redox Biol. 2020;37:101740. https://doi.org/10.1016/j.redox.2020.101740