تقيم هذه الدراسة تعبير ARHGAP22 في سرطان الخلايا الكلوية صافي الخلايا وعلاقاته بالإنذار، والسمات السريرية المرضية، والبيئة المجهرية المناعية للورم، والحساسية الدوائية المتوقعة حوسبياً.
مقالة بحثية
ARHGAP22 كعلامة حيوية تنبؤية محتملة في سرطان الخلايا الكلوية صافيه الخلايا: رؤى حول المناعة الورمية وشبكات التعبير المشترك
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يُعد سرطان الخلايا الكلوية الصافي (ccRCC) النوع الفرعي الأكثر شيوعاً لسرطان الكلى، ويتميز بتغاير سريري كبير، مما يبرز الحاجة إلى مؤشرات حيوية إنذارية موثوقة. قيمت هذه الدراسة نمط تعبير ARHGAP22، وأهميته الإنذارية، وارتباطاته المناعية في سرطان ccRCC باستخدام بيانات ترانسكريبتومية وسريرية من مجموعة أطلس جينوم السرطان لسرطان الخلايا الكلوية الصافي (TCGA-KIRC)، جنباً إلى جنب مع بيانات تحقق خارجية ومعلومات عن التعبير البروتيني من أطلس البروتين البشري (HPA). تمت مقارنة تعبير ARHGAP22 بين الأنسجة الورمية والأنسجة الطبيعية المجاورة، كما تم تقييم ارتباطاته بالبقاء الإجمالي، والخصائص المرضية السريرية، ودرجات البيئة الدقيقة للورم، والنسب التقديرية للخلايا المناعية. كما أُجريت تحليلات التعبير المشترك والإثراء الوظيفي لتوصيف الارتباطات البيولوجية المحتملة. أظهرت النتائج أن ARHGAP22 كان مرتفع التعبير بشكل ملحوظ في أنسجة ccRCC على المستوى الترانسكريبتومي، مع ملاحظة اختلافات مقابلة في صور الكيمياء النسيجية المناعية. ارتبط التعبير المرتفع لـ ARHGAP22 بقصر مدة البقاء الإجمالي، وميزات مرضية سريرية متقدمة، وارتفاع قيم ImmuneScore وStromalScore وESTIMATEScore. وأظهر التحليل القائم على CIBERSORT أن مجموعة التعبير المرتفع لديها نسب تقديرية أعلى من البلاعم M2 والخلايا التائية المنظمة، ونسب تقديرية أقل من الخلايا البائية الساذجة، والخلايا الصارية الساكنة، والخلايا التغصنية المنشطة بعد تصحيح معدل الاكتشاف الخاطئ. ربطت تحليلات الإثراء الوظيفي الجينات المرتبطة بـ ARHGAP22 بالعمليات المناعية، وهجرة الخلايا، ومسارات التأشير بوساطة الكيموكينات والسيتوكينات. تشير هذه النتائج إلى أن ARHGAP22 قد يمثل مؤشراً حيوياً محتملاً للإنذار والارتباط المناعي في سرطان ccRCC، على الرغم من الحاجة إلى مزيد من التحقق السريري والتجريبي المستقل.
المقدمة
يُعد سرطان الخلايا الكلوية ذات الخلايا الصافية (ccRCC) النوع النسيجي الأكثر شيوعاً لسرطان الخلايا الكلوية، حيث يمثل ما يقرب من 70%–80% من الحالات، ويساهم بشكل كبير في معدلات الوفيات المرتبطة بسرطان الكلى1˒2. وقد ارتفع معدل الإصابة بسرطان الخلايا الكلوية بشكل عام في السنوات الأخيرة، مع وجود تباين وبائي ملحوظ عبر المناطق المختلفة. وتشمل عوامل الخطر المعروفة التدخين، والسمنة، وارتفاع ضغط الدم، ومرض الكلى المزمن3˒4. يتميز سرطان الخلايا الكلوية ذات الخلايا الصافية بشراسة واضحة وتغاير جزيئي. تظهر لدى مجموعة فرعية من المرضى أمراض نقيلية عند التشخيص، كما يظل التكرار والتقدم بعد الجراحة أمراً شائعاً2˒5. وعلى المستوى الجزيئي، يُعرف تثبيط جين von Hippel–Lindau (VHL) والتنشيط المستمر لإشارات العامل المحفز بنقص الأكسجة (HIF) بأنهما حدثان رئيسيان في إمراض ccRCC، ويصاحبهما تغيرات جينومية وفوق جينية واسعة النطاق6˒7. وعلى الرغم من أن العلاجات الموجهة والعلاجات المناعية قد حسنت النتائج في المراحل المتقدمة من المرض، إلا أن الاستجابات العلاجية تظل متغايرة للغاية، مما يؤكد الحاجة إلى مؤشرات حيوية موثوقة للتنبؤ بالمرض وللجوانب المتعلقة بالمناعة8,9,10.
تعد إنزيمات Rho guanosine triphosphatases (Rho GTPases) مفاتيح جزيئية تنظم إعادة تشكيل الهيكل الخلوي، واستقطاب الخلايا، والالتصاق، والهجرة، والغزو، ولها أدوار متعددة الأوجه في تكون الأورام وتطور السرطان11˒12. وبالإضافة إلى تنظيم تكاثر الخلايا الورمية، والموت الخلوي المبرمج، والقدرة على الحركة، تساهم إشارات Rho GTPase في تكوين الأوعية الدموية، والاستجابات الالتهابية، وإعادة تشكيل البيئة المناعية الدقيقة للورم13,14,15. وقد حظيت الأهمية البيولوجية لإشارات Rho GTPase في سرطان الخلايا الكلوية الرائق (ccRCC) باهتمام متزايد؛ حيث أفادت التقارير أن إشارات Rac تعزز نمو ccRCC والتحول الوعائي، بينما قد يعتمد ccRCC المدفوع بمسار VHL/HIF على مسار Rho GTPase/Rho-associated coiled-coil-containing protein kinase (ROCK)16˒17. كما رُبطت التواقيع الجينية المتعلقة بـ Rho GTPase بسوء الإنذار، والحالة المثبطة للمناعة، والاستجابات المتباينة للعلاج المناعي في ccRCC، مما يشير إلى أن هذا المسار قد يمثل رابطاً جزيئياً هاماً بين تطور الورم والمناعة الورمية18˒19.
ينتمي ARHGAP22 إلى عائلة البروتينات المنشطة لـ Rho GTPase (RhoGAP) والعائلة الفرعية المرتبطة بـ FilGAP، ويعمل بشكل أساسي كـ RhoGAP متخصص في Rac يشارك في التنظيم التضادي لمحور RhoA–Rac120˒21. يحتوي البروتين على نطاق تماثل بليكسترين (PH) ونطاق RhoGAP، ويمكنه تنظيم نشاط Rac من خلال التموضع الإندوسومي والنقل إلى الغشاء البلازمي، مما يؤثر بالتالي على تكوين الأقدام الصفائحية، وانتشار الخلايا، وهجرتها20˒22˒23. وقد ربطت الدراسات السابقة ARHGAP22 بديناميكيات الهيكل الخلوي، وحركية الخلايا الورمية، والبيئة المناعية الدقيقة للورم، وأدوار محتملة كعلامة بيولوجية في عدة أنواع من الأورام الخبيثة20,23,24,25. ومع ذلك، لا يزال نمط التعبير، والأهمية الإنذارية، والارتباطات المناعية، والصلة العلاجية المحتملة لـ ARHGAP22 في سرطان الخلايا الكلوية الصافية (ccRCC) غير محددة بشكل كافٍ. لذلك، قيمت الدراسة الحالية ما إذا كان التعبير عن ARHGAP22 مرتبطاً بالتطور المرضي السريري، وإنذار المريض، والترشح المناعي، والحساسية الدوائية المتوقعة حوسبياً، وشبكات التعبير المشترك في ccRCC، بهدف تقييم قيمته المحتملة كعلامة بيولوجية إنذارية ومرتبطة بالمناعة.
البروتوكول
استخدمت هذه الدراسة بيانات مجهولة الهوية ومتاحة للعامة من TCGA وHPA وقواعد بيانات أخرى مفتوحة الوصول، ولم تتضمن استقطاب مشاركين بشريين جدد، أو تجارب على الحيوانات، أو معلومات خاصة يمكن تحديد هوية أصحابها. وبناءً على ذلك، لم تكن هناك حاجة لموافقة أخلاقية مؤسسية إضافية أو موافقة مستنيرة. تتوفر معلومات مفصلة حول الأدوات المستخدمة في البروتوكول في جدول المواد.
1. مجموعات البيانات العامة والتحليل المعلوماتي الحيوي
تم استخدام مجموعات بيانات متاحة للعامة، ولم يتم إجراء أي بحث مباشر يشمل مشاركين بشريين أو حيوانات. تم الحصول على البيانات النسخية والسريرية من مشروع أطلس جينوم السرطان لسرطان الخلايا الكلوية الصافية (TCGA-KIRC)، واستُرجعت بيانات التعبير البروتيني من أطلس البروتين البشري (Human Protein Atlas). وقد مكّن هذا النهج الحسابي من الفرز الفعال لمجموعات البيانات النسخية والسريرية واسعة النطاق، ودعم التحديد الأولي للمؤشرات الحيوية المرشحة، ووفر أساساً للتحقق التجريبي اللاحق. أُجريت جميع التحليلات الحسابية باستخدام برمجيات إحصائية.
2. الحصول على البيانات واختيار العينات
تم الدخول إلى بوابة بيانات Genomic Data Commons، واختيار مشروع TCGA-KIRC. كما تم تنزيل بيانات تحليل النسخ (Transcriptome-profiling) والمعلومات السريرية المقابلة لسرطان الخلايا الكلوية الصافي (ccRCC). واستُخدمت بيانات تعبير الحمض النووي الريبوزي المرسال (mRNA) المُطبعة وفقاً لمعيار عدد النسخ لكل مليون (TPM) لإجراء تحليلات النسخ اللاحقة. استُخرجت قيم تعبير ARHGAP22 من مصفوفة TCGA-KIRC للنسخ، وتمت مطابقتها مع السجلات السريرية المقابلة باستخدام الرموز الشريطية (barcodes) لعينات TCGA. وشمل ذلك أنسجة الأورام الأولية وأنسجة الكلى الطبيعية المجاورة التي تتوفر لها بيانات تعبير ARHGAP22 وتوصيفات سريرية. واستُبعدت العينات التي تفتقر إلى قيم تعبير ARHGAP22، أو التي تحتوي على معلومات سريرية أو بيانات بقاء غير مكتملة، أو السجلات المكررة، أو تلك التي كانت فترات البقاء فيها أقل من 30 يوماً. وبعد عملية التصفية، تم الاحتفاظ بـ 533 عينة ورمية و72 عينة من الأنسجة الطبيعية المجاورة لإجراء التحليلات اللاحقة.
3. تحليل التعبير الجيني الشامل لأنواع السرطان
أُجري تحليل التعبير الجيني الشامل لأنواع السرطان لـ ARHGAP22 باستخدام وحدة Gene_DE في TIMER2.0 (http://timer.cistrome.org/؛ تم الدخول إليه في 12 أبريل 2026). استُخدمت بيانات تسلسل RNA من TCGA لمقارنة تعبير ARHGAP22 بين الأنسجة الورمية والأنسجة الطبيعية المقابلة لها عبر أنواع متعددة من السرطان. عُرِضت قيم التعبير بصيغة log2(TPM)، وقُيِّم التعبير التفاضلي باستخدام اختبار Wilcoxon rank-sum المطبق في TIMER2.0. واعتُبرت قيمة P الثنائية التي تقل عن 0.05 ذات دلالة إحصائية.
4. التحقق الخارجي باستخدام قاعدة بيانات GEO
أُجري التحقق الخارجي باستخدام مجموعة بيانات Gene Expression Omnibus ذات الرقم GSE167573 عبر منصة BEST الإلكترونية (https://rookieutopia.hiplot.com.cn/app_direct/BEST/; تم الدخول إليها في 9 يوليو 2026). وقورنت مستويات تعبير ARHGAP22 في أنسجة ccRCC وأنسجة الكلى الطبيعية باستخدام بيانات التعبير المُطبعة (normalized expression data) التي وفرتها المنصة، وتم تقييمها باستخدام اختبار t لطلاب غير المزاوج (unpaired Student’s t-test). ولإجراء تحليل البقاء، قُسم المرضى إلى مجموعات ذات تعبير مرتفع ومنخفض باستخدام طريقة القطع المثلى (optimal cutoff method) الخاصة بالمنصة، وقُيم البقاء الإجمالي باستخدام تحليل Kaplan–Meier مع اختبار log-rank. واعتُبرت قيمة P ذات الطرفين التي تقل عن 0.05 ذات دلالة إحصائية.
5. تحليل تعبير ARHGAP22
استُخرجت بيانات تعبير الحمض النووي الريبوزي المرسال ARHGAP22 المُطبعة وفقاً لـ TPM من مجموعة TCGA-KIRC، وحُوِّلت إلى log2(TPM + 1) قبل التحليل الإحصائي. كما تم تقييم التعبير التفاضلي لـ ARHGAP22 بين أنسجة الورم الأولية وأنسجة الكلى الطبيعية المجاورة. واستُخدم اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test) لإجراء المقارنات غير المقترنة بين الأنسجة الورمية والطبيعية. أما بالنسبة للتحليل المقترن، فقد تم تحديد الأزواج المتطابقة من الورم والأنسجة الطبيعية باستخدام الرموز الشريطية لمرضى TCGA، وطُبق اختبار ويلكوكسون لرتب الإشارات (Wilcoxon signed-rank test) لمقارنة تعبير ARHGAP22 بين الأنسجة الطبيعية المجاورة وأنسجة الورم المقابلة لها. واعتُبرت قيمة P ثنائية الجانب التي تقل عن 0.05 دالة إحصائياً.
6. تحليل البقاء ومنحنى خصائص تشغيل المستقبل
أُجريت تحليلات البقاء ومنحنى خصائص تشغيل المستقبل (ROC) المعتمد على الوقت باستخدام عينات أورام TCGA-KIRC التي تتوفر لها بيانات متابعة سريرية. تم تحويل وقت البقاء الإجمالي من أيام إلى سنوات. قُسِّم المرضى إلى مجموعات ذات تعبير مرتفع ومنخفض لـ ARHGAP22 بناءً على قيمة الوسيط لتعبير ARHGAP22، وطُبِّقت نقطة الفصل نفسها باستمرار في جميع التحليلات التي تتضمن التقسيم القائم على التعبير. أُنشئت منحنيات Kaplan–Meier باستخدام حزمة survival وحزمة survminer. وقُيِّمت الفروق بين المجموعات باستخدام اختبار log-rank. كما استُخدم نموذج انحدار المخاطر النسبية لـ Cox لتقدير نسب المخاطر وفواصل الثقة 95%. وأُنشئت منحنيات ROC المعتمدة على الوقت باستخدام حزمة timeROC. حُسبت المساحات تحت المنحنى عند 1 و3 و5 سنوات باستخدام طريقة وزن Aalen. واعتُبرت قيمة P ذات الطرفين التي تقل عن 0.05 ذات دلالة إحصائية.
7. تحليل الارتباط السريري المرضي
تَم تحليل الارتباط بين تعبير ARHGAP22 والخصائص السريرية المرضية باستخدام عينات أورام TCGA-KIRC، مع استبعاد العينات الطبيعية. صُنِّف العمر إلى فئتين: 65 عاماً أو أقل، وأكبر من 65 عاماً. كما استُبعدت العينات ذات التوصيفات المجهولة أو المفقودة من التحليل المقابل. استُخدم اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test) للمقارنات بين مجموعتين، واختبار كروكسال-واليس (Kruskal–Wallis test) للمقارنات التي تشمل ثلاث مجموعات أو أكثر. أُنشئت المخططات الكمانية (Violin plots) باستخدام حزمة ggpubr وggplot2 وscales. وللتصور عبر الخرائط الحرارية، صُنِّف المرضى إلى مجموعات ذات تعبير عالٍ ومنخفض لـ ARHGAP22 باستخدام قيمة الوسيط كنقطة فصل. قُيِّمت الارتباطات بين مجموعات التعبير والمتغيرات السريرية المرضية باستخدام اختبارات مربع كاي (chi-square tests). أُنشئت الخرائط الحرارية باستخدام ComplexHeatmap، بعد المعالجة المسبقة بواسطة limma. واعتُبرت قيمة P ذات الطرفين التي تقل عن 0.05 ذات دلالة إحصائية.
8. بناء المخطط البياني (Nomogram)
تم بناء مخطط بياني للتنبؤ بالإنذار عن طريق دمج تعبير ARHGAP22 مع الخصائص المرضية السريرية المتاحة في نموذج انحدار مخاطر كوكس النسبية (Cox proportional hazards regression model). استُخدم النموذج لتقدير البقاء على قيد الحياة الإجمالي لمدة سنة واحدة و3 سنوات و5 سنوات في مجموعة TCGA-KIRC. تم حساب درجات المخاطر لكل مريض باستخدام نموذج كوكس المطبق. كما تم إنشاء منحنيات المعايرة للبقاء على قيد الحياة الإجمالي لمدة سنة واحدة و3 سنوات و5 سنوات باستخدام طريقة Kaplan–Meier مع 1,000 تكرار لإعادة أخذ العينات بطريقة bootstrap. وتم تقييم مدى التطابق بين احتمالات البقاء المتوقعة بواسطة المخطط البياني ونتائج البقاء الملحوظة. أُجري انحدار كوكس باستخدام حزمة survival، بينما نُفذ تصور المخطط البياني وتحليلات المعايرة باستخدام regplot وrms. واعتُبرت القيمة الاحتمالية P ذات الجانبين التي تقل عن 0.05 ذات دلالة إحصائية.
9. تحليل التعبير المشترك
استُخدمت بيانات النسخ المتوفرة من عينات أورام TCGA-KIRC لتقييم علاقات التعبير المشترك بين ARHGAP22 وجميع الجينات الأخرى باستخدام تحليل ارتباط بيرسون. وعُرّفت الجينات التي يبلغ معامل ارتباط بيرسون المطلق لها أكثر من 0.6 وقيمة P أقل من 0.001 بأنها جينات ذات تعبير مشترك معنوي. ثم رُتبت الجينات ذات التعبير المشترك المعنوي وفقاً للقيمة المطلقة لمعامل الارتباط. واختيرت الجينات الأعلى تصنيفاً لبناء مصفوفة ارتباط، كما تم إنشاء مخطط وتري (chord diagram) لتصوير شبكة التعبير المشترك المرتبطة بـ ARHGAP22.
10. تحليلات الجينات ذات التعبير المتباين والإثراء الوظيفي
أُجري تحليل التعبير المتباين بين مجموعتي التعبير المرتفع والمنخفض لـ ARHGAP22 باستخدام اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test) مع تصحيح معدل الاكتشاف الكاذب (FDR). وعُرِّفت الجينات التي يزيد التغير اللوغاريتمي المضاعف (log2 fold change) المطلق لها عن 1 وكان معدل الاكتشاف الكاذب (FDR) أقل من 0.05 على أنها جينات ذات تعبير متباين معنوي. جرى تمثيل النتائج بصرياً باستخدام مخطط بركاني (volcano plot) وخريطة حرارية (heatmap). كما أُجريت تحليلات إثراء الوجود الجيني (Gene Ontology) وموسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) باستخدام clusterProfiler. حُوِّلت رموز الجينات إلى معرفات Entrez باستخدام org.Hs.eg.db. واعتُبرت مصطلحات الوجود الجيني (Gene Ontology) ومسارات موسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) التي سجلت قيمة P اسمية أقل من 0.05 وقيمة P معدلة وفقاً لمعدل الاكتشاف الكاذب (FDR) أقل من 0.05 ذات إثراء معنوي. أما تحليل إثراء مجموعة الجينات (Gene Set Enrichment Analysis) فقد أُجري باستخدام مجموعات جينات موسوعة كيوتو للجينات والجينومات من ملف قاعدة بيانات التواقيع الجزيئية c2.cp.kegg.v7.4.symbols.gmt. رُتبت الجينات حسب التغير اللوغاريتمي المضاعف (log2 fold change)، واعتُبرت مجموعات الجينات التي سجلت قيمة P اسمية < 0.05 ذات إثراء معنوي.
11. تحليل الارتشاح المناعي ونقاط التفتيش المناعية
أُجريت تحليلات الارتشاح المناعي ونقاط التفتيش المناعية باستخدام عينات أورام TCGA-KIRC. وحُسبت قيم StromalScore وImmuneScore وESTIMATEScore باستخدام حزمة estimate. كما قُدرت كسور الخلايا المناعية باستخدام نص CIBERSORT R البرمجي، مع إجراء 1,000 تبديلة وتطبيع ربيعي (quantile normalization). وتم الاحتفاظ بالعينات التي كانت قيمة P لفك التلافيف في CIBERSORT فيها أقل من 0.05. قُسم المرضى إلى مجموعتين: مجموعة ARHGAP22-high ومجموعة ARHGAP22-low وفقاً لمتوسط مستوى تعبير ARHGAP22. وقُيمت الفروق في درجات ESTIMATE وكسور الخلايا المناعية بين المجموعتين باستخدام اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test). كما تم تقييم الارتباطات بين تعبير ARHGAP22 وجينات نقاط التفتيش المناعية باستخدام تحليل ارتباط بيرسون. وجرى تعديل قيم P الناتجة عن مقارنات الخلايا المناعية المتعددة واختبارات ارتباط نقاط التفتيش المناعية باستخدام طريقة Benjamini–Hochberg FDR، واعتُبرت قيمة FDR التي تقل عن 0.05 ذات دلالة إحصائية. وتم تمثيل جينات نقاط التفتيش المناعية ذات الدلالة الإحصائية (FDR-significant) بصرياً باستخدام خرائط الحرارة الارتباطية التي أُنشئت بواسطة corrplot. نُفذت عمليات المعالجة المسبقة للبيانات والتمثيل البصري بشكل أساسي باستخدام limma وggpubr وcorrplot.
12. التنبؤ بالحساسية للأدوية
استُخدمت بيانات النسخ الورمية من TCGA-KIRC بعد استبعاد عينات الأنسجة الطبيعية. وحُسبت قيم تركيز التثبيط النصفي القصوى المتوقعة حاسوبيًا باستخدام حزمة oncoPredict ومجموعة البيانات المرجعية القائمة على Genomics of Drug Sensitivity in Cancer 2. وقُسِّم المرضى إلى مجموعتين: مجموعة تعبير ARHGAP22 العالي ومجموعة تعبير ARHGAP22 المنخفض، وذلك باستخدام القيمة الوسيطة لتعبير ARHGAP22. وقورنت قيم تركيز التثبيط النصفي القصوى المتوقعة بين المجموعتين باستخدام اختبار Wilcoxon rank-sum. كما عُدِّلت قيم P الناتجة عن مقارنات الأدوية المتعددة باستخدام طريقة Benjamini–Hochberg، واعتُبر معدل الاكتشاف الخاطئ (FDR) الذي يقل عن 0.05 ذا دلالة إحصائية. وفُسِّرت النتائج على أنها تقديرات حاسوبية متوقعة للحساسية للأدوية وليست استجابات دوائية تم التحقق منها تجريبيًا أو ملاحظتها سريريًا.
13. التحقق من أطلس البروتين البشري
تم الدخول إلى قاعدة بيانات أطلس البروتين البشري (Human Protein Atlas)، والبحث عن ARHGAP22. تمت مراجعة قسم الأنسجة (Tissue) لتقييم تعبير بروتين ARHGAP22 في أنسجة الكلى الطبيعية. ثم فُتح قسم الأمراض (Pathology)، واختير سرطان الخلايا الكلوية الصافي (clear cell renal cell carcinoma)، ورُوجعت مستويات تعبير بروتين ARHGAP22 في أنسجة الورم. جُلبت صور كيميائية نسيجية مناعية ممثلة لأنسجة الكلى الطبيعية وأنسجة ccRCC، واختيرت لإدراجها في المخطوطة لمقارنة تعبير بروتين ARHGAP22 بين الأنسجة الطبيعية وأنسجة الورم.
النتائج
تحليل ملف التعبير الجيني لـ ARHGAP22 في أنواع السرطانات المختلفة
أظهر تحليل ملف النسخ في أنواع السرطانات المختلفة تباينًا ملحوظًا في تعبير ARHGAP22 عبر أنواع الأورام والأنسجة الطبيعية المقابلة لها (الشكل 1). ولوحظ وجود اتجاه عام نحو زيادة تعبير ARHGAP22 في عدة أورام صلبة. وكان تعبير ARHGAP22 أعلى بشكل ملحوظ في الأنسجة الورمية مقارنة بالأنسجة الطبيعية المقابلة في سرطان الثدي الغازي، وسرطان القنوات الصفراوية، وسرطان الخلايا الحرشفية في الرأس والعنق، والورم الكروموفوبي الكلوي، وسرطان الخلايا الكلوية الصافية، وسرطان الخلايا الكلوية الحليمي، وسرطان الخلايا الكبدية. وأشارت هذه النتائج إلى أن ARHGAP22 يتم التعبير عنه بشكل تفاضلي عبر أنواع متعددة من السرطانات، وقد يكون له أهمية كعلامة بيولوجية مرتبطة بالأورام.
نمط التعبير والقيمة الإنذارية لبروتين ARHGAP22 في سرطان الخلايا الكلوية الصافية
تم تقييم نمط التعبير والأهمية السريرية لبروتين ARHGAP22 في سرطان الخلايا الكلوية الصافية (ccRCC) باستخدام البيانات النسخية، وتحليلات البقاء، ومجموعة بيانات تحقق مستقلة، وصور كيمياء نسيجية مناعية. كان تعبير ARHGAP22 أعلى بكثير في أنسجة ccRCC مقارنة بأنسجة الكلى الطبيعية في كل من العينات غير المقترنة والمقترنة من أطلس جينوم السرطان لسرطان الخلايا الكلوية الصافية (TCGA-KIRC) (الشكل 1B، C). وأظهر تحليل Kaplan–Meier أن المرضى الذين لديهم تعبير عالٍ لبروتين ARHGAP22 لديهم معدل بقاء إجمالي (OS) أقصر بكثير من المرضى ذوي التعبير المنخفض (P = 0.013؛ الشكل 1D). وأدى تحليل خصائص تشغيل المستقبل المعتمد على الوقت إلى الحصول على مساحات تحت المنحنى بلغت 0.641 و0.637 و0.641 للبقاء الإجمالي لمدة سنة واحدة و3 سنوات و5 سنوات على التوالي، مما يشير إلى أداء إنذاري متوسط (الشكل 1E). تم تقييم النتائج بشكل أكبر باستخدام مجموعة بيانات GSE167573 المستقلة، حيث كان تعبير ARHGAP22 أعلى بكثير في أنسجة ccRCC مقارنة بأنسجة الكلى الطبيعية (الشكل 1F)، وارتبط التعبير العالي لبروتين ARHGAP22 بقصر مدة البقاء الإجمالي (الشكل 1G). كما أظهرت الصور الكيمياء نسيجية المناعية المستمدة من أطلس البروتين البشري صبغاً أقوى لبروتين ARHGAP22 في أنسجة ccRCC مقارنة بأنسجة الكلى الطبيعية، مما قدم دعماً إضافياً على مستوى البروتين للنتائج النسخية (الشكل 1H، I).
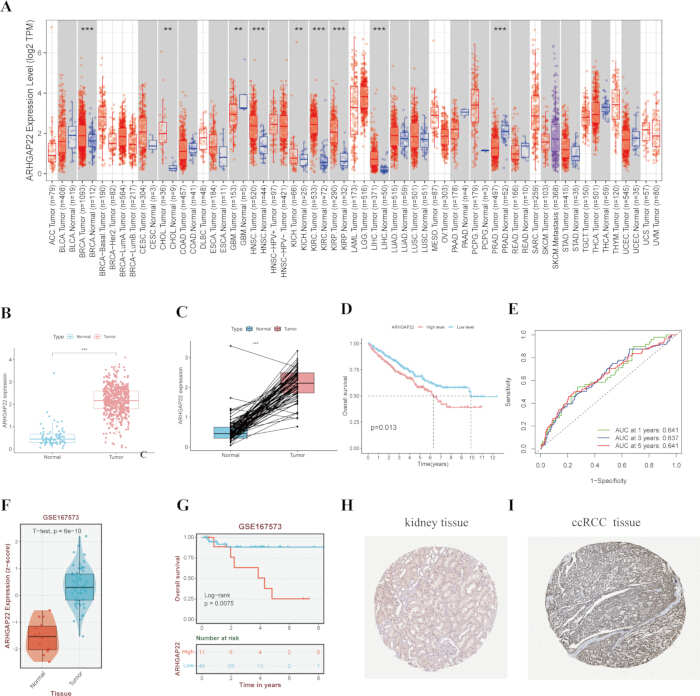
الشكل 1: تعبير ARHGAP22 في مختلف السرطانات، ونمط التعبير، والقيمة الإنذارية في سرطان الخلايا الكلوية الصافية. (أ) ملف تعبير ARHGAP22 في مختلف أنواع الأورام والأنسجة الطبيعية المقابلة لها. (ب) تعبير ARHGAP22 في أنسجة سرطان الخلايا الكلوية الصافية (ccRCC) غير المقترنة وأنسجة الكلى الطبيعية. (ج) تعبير ARHGAP22 في أنسجة ccRCC المقترنة وأنسجة الكلى الطبيعية المجاورة. (د) منحنيات كابلان-ماير للبقاء الإجمالي بمقارنة المرضى ذوي التعبير العالي والمنخفض لـ ARHGAP22. (هـ) منحنيات خصائص تشغيل المستقبل المعتمدة على الوقت لتقييم الأداء الإنذاري لـ ARHGAP22 للبقاء الإجمالي لمدة 1 و3 و5 سنوات. (و) التحقق من تعبير ARHGAP22 في مجموعة بيانات GSE167573. (ز) تحليل كابلان-ماير للبقاء الإجمالي في مجموعة بيانات GSE167573. (ح، ط) صور كيميائية نسيجية مناعية من أطلس البروتين البشري تظهر تعبير بروتين ARHGAP22 في أنسجة الكلى الطبيعية (ح) وأنسجة ccRCC (ط). *P < 0.05; **P < 0.01; ***P < 0.001. الاختصارات: ccRCC، سرطان الخلايا الكلوية الصافية؛ OS، البقاء الإجمالي؛ ROC، خصائص تشغيل المستقبل؛ DEG، الجين المعبر عنه تفاضلياً؛ GO، الوجود الجيني؛ KEGG، موسوعة كيوتو للجينات والجينومات؛ GSEA، تحليل إثراء مجموعة الجينات؛ FDR، معدل الاكتشاف الخاطئ؛ IC50، التركيز التثبيطي النصفي الأقصى. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
ارتباط ARHGAP22 بالسمات السريرية المرضية
تم تقييم الارتباط بين تعبير ARHGAP22 والخصائص السريرية المرضية لتحديد ما إذا كان التعبير يتباين باختلاف شدة المرض. كان تعبير ARHGAP22 أعلى بشكل ملحوظ لدى المرضى الذين يعانون من تصنيفات T و M و N المتقدمة، بما في ذلك المرضى المصابون بمرض نقائلي (الشكل 2A–C). كما زاد التعبير مع تقدم الدرجة النسيجية والمرحلة السريرية (الشكل 2D، E). وأظهر تحليل الخريطة الحرارية وجود ارتباطات ذات دلالة إحصائية بين التعبير العالي لـ ARHGAP22 والدرجة النسيجية الأعلى، والمرحلة السريرية المتقدمة، وتصنيف الورم-العقدة-النقائل غير المواتي (الشكل 2F). وأشارت هذه النتائج إلى أن ارتفاع تعبير ARHGAP22 يرتبط بسمات سريرية مرضية أكثر عدوانية في سرطان الخلايا الكلوية الرائق (ccRCC).
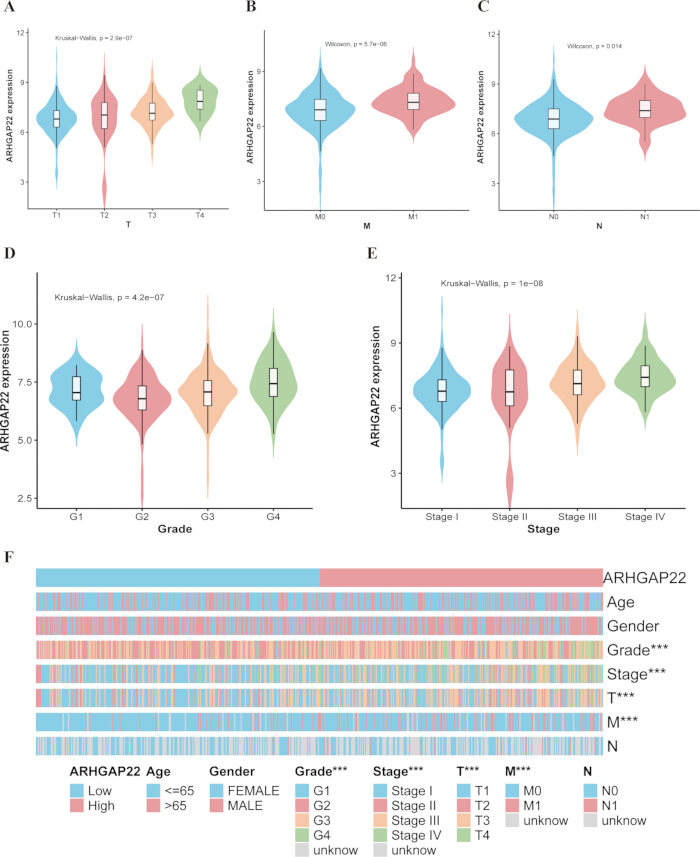
الشكل 2: الارتباط بين التعبير عن ARHGAP22 والسمات السريرية المرضية في سرطان الخلايا الكلوية صافيه الخلايا. (A-C) التعبير عن ARHGAP22 وفقًا لتصنيفات T وM وN على التوالي. (D) التعبير عن ARHGAP22 وفقًا للدرجة النسيجية. (E) التعبير عن ARHGAP22 وفقًا للمرحلة السريرية. (F) خريطة حرارية توضح الارتباطات بين التعبير عن ARHGAP22 والخصائص السريرية المرضية. *P < 0.05; **P < 0.01; ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
السمات السريرية المرضية ومعدل البقاء على قيد الحياة الإجمالي
أظهر تحليل كابلان-ماير اختلافات جوهرية في معدل البقاء على قيد الحياة الإجمالي (OS) عبر المجموعات الفرعية السريرية المرضية (الشكل 3). وكان المرضى الذين يعانون من درجات نسيجية أعلى، G3–G4، لديهم معدل بقاء على قيد الحياة إجمالي أقصر بكثير مقارنة بالمرضى ذوي الدرجات الأدنى، G1–G2 (P < 0.0001؛ الشكل 3A). كما كان المرضى في المرحلة III–IV من المرض لديهم معدل بقاء على قيد الحياة إجمالي أقصر بكثير من المرضى في المرحلة I–II (P < 0.0001؛ الشكل 3B). واختلف معدل البقاء على قيد الحياة الإجمالي بشكل ملحوظ عبر المجموعات الفرعية لتصنيف T، حيث ارتبطت تصنيفات T المتقدمة بنتائج أقل ملاءمة (P < 0.0001؛ الشكل 3C). كما سجل المرضى الذين يعانون من نقائل في العقد الليمفاوية (N1) أو نقائل بعيدة (M1) معدل بقاء على قيد الحياة إجمالي أقصر بكثير من أولئك الذين لا يعانون من نقائل ليمفاوية أو بعيدة (كلاهما P < 0.0001؛ الشكل 3D، E). وأكدت هذه النتائج أن الدرجة النسيجية، والمرحلة السريرية، وتصنيف الورم والعقد والنقائل (TNM) كانت مرتبطة بالبقاء على قيد الحياة في حالات سرطان الخلايا الكلوية الصافية (ccRCC).
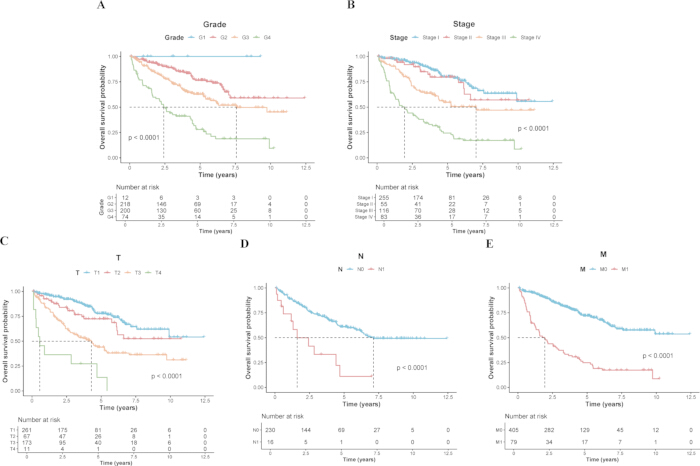
الشكل 3: البقاء الإجمالي على قيد الحياة وفقاً للخصائص العيادية المرضية في سرطان الخلايا الكلوية صافية الخلايا. (A–E) منحنيات كابلان-ماير للبقاء الإجمالي على قيد الحياة وفقاً للدرجة النسيجية، والمرحلة السريرية، وتصنيف T، وتصنيف N، وتصنيف M، على التوالي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
مخطط ترقبي لسرطان الخلايا الكلوية الصافي
تم إنشاء مخطط ترقبي يدمج تعبير ARHGAP22 مع الخصائص المرضية السريرية المتاحة لتقدير معدل البقاء على قيد الحياة الإجمالي (OS) لمدة سنة واحدة و3 سنوات و5 سنوات لدى المرضى المصابين بـ ccRCC (الشكل 4A). وأظهر تحليل المعايرة توافقاً بين احتمالات البقاء المتوقعة بواسطة المخطط الترقبي والاحتمالات الملحوظة في جميع النقاط الزمنية الثلاث. كما كانت منحنيات المعايرة قريبة من خط المرجع المثالي، مما يشير إلى أداء معايرة مرضٍ (الشكل 4B). وقد سجل النموذج السريري مؤشر توافق قدره 0.779 (فاصل ثقة 95%، 0.729–0.828)، بينما أدت إضافة ARHGAP22 إلى مؤشر توافق قدره 0.781 (فاصل ثقة 95%، 0.735–0.827)، مما يشير إلى تحسن ترقبي تدريجي طفيف.
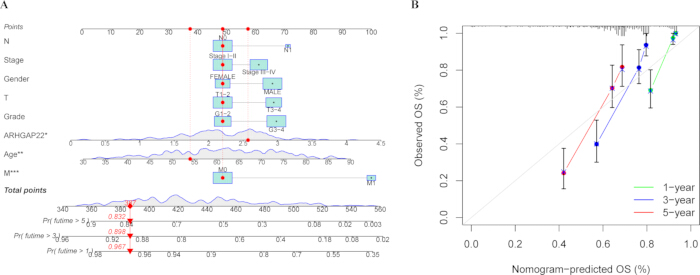
الشكل 4: نوجرام إنذاري قائم على ARHGAP22 وتحليل المعايرة في سرطان الخلايا الكلوية صافية الخلايا. (A) نوجرام لتقدير البقاء الإجمالي على قيد الحياة لمدة سنة واحدة، و3 سنوات، و5 سنوات. (B) منحنيات المعايرة التي تقارن بين البقاء الإجمالي على قيد الحياة الملحوظ والمتوقع بواسطة النوجرام لمدة سنة واحدة، و3 سنوات، و5 سنوات. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحليل الشبكة الجزيئية لـ ARHGAP22
أُجري تحليل الارتباط لتوصيف الشبكة الجزيئية المرتبطة بتعبير ARHGAP22. وأظهرت شبكة الارتباط وجود ارتباطات بين ARHGAP22 وعدة جينات في سرطان الخلايا الكلوية الصافي (ccRCC) (الشكل 5A). وكان تعبير ARHGAP22 مرتبطاً إيجابياً وبشكل ملحوظ مع كل من GMIP وTRPM2 وCARD9 وFMNL1 وSTAC3 وMYO9B. كما لوحظت ارتباطات سلبية ملحوظة مع BSND وHEPACAM2 وATP6V1G3 وTMEM38A وFOXI1 (الشكل 5B–L). وأشارت هذه النتائج إلى أن تعبير ARHGAP22 كان مرتبطاً بشبكة تعبير مشترك معقدة في ccRCC.
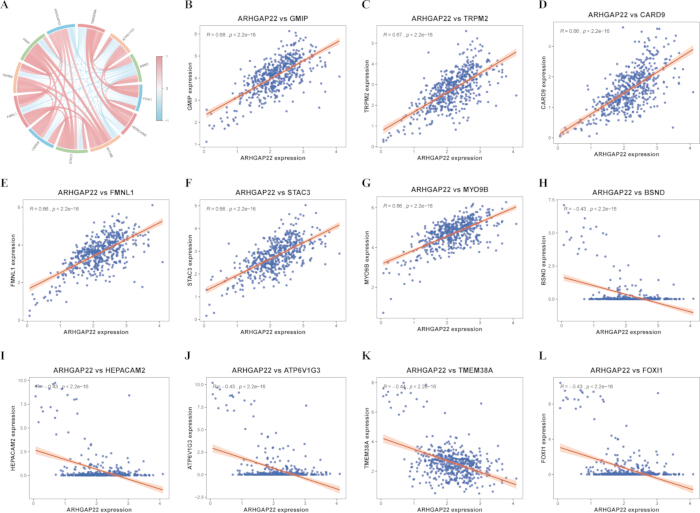
الشكل 5: السمات الجزيئية المرتبطة بـ ARHGAP22 في سرطان الخلايا الكلوية الصافية. (A) شبكة ارتباط توضح الروابط بين ARHGAP22 والجينات ذات الصلة. (B–G) ارتباطات إيجابية بين ARHGAP22 وكل من GMIP و TRPM2 و CARD9 و FMNL1 و STAC3 و MYO9B، على التوالي. (H–L) ارتباطات سلبية بين ARHGAP22 وكل من BSND و HEPACAM2 و ATP6V1G3 و TMEM38A و FOXI1، على التوالي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الجينات ذات التعبير المتباين المرتبطة بـ ARHGAP22
قُسمت عينات سرطان الخلايا الكلوية ذات الخلايا الصافية إلى مجموعتين: مجموعة ذات تعبير مرتفع ومجموعة ذات تعبير منخفض لبروتين ARHGAP22 باستخدام قيمة التعبير الوسيطة، وأُجري تحليل للتعبير التفاضلي. وقد تبين أن هناك ما مجموعه 334 جيناً زاد تعبيرها، و38 جيناً انخفض تعبيرها في المجموعة ذات التعبير المرتفع (الشكل 6أكشف تحليل الخريطة الحرارية عن أنماط تعبير متميزة بين مجموعتي ARHGAP22 المرتفعة والمنخفضة، مما يشير إلى أن الجينات المحددة ذات التعبير المتفاوت قد فصلت بين المجموعتين. (الشكل 6B).
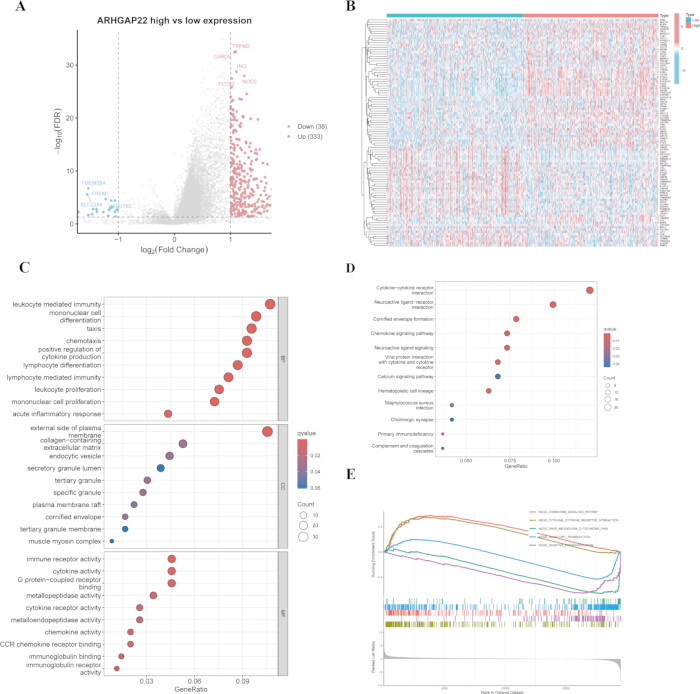
الشكل 6: الجينات ذات التعبير المتباين المرتبطة بـ ARHGAP22 والإثراء الوظيفي. (A) مخطط البركان للجينات ذات التعبير المتباين بين مجموعات التعبير المرتفع والمنخفض لـ ARHGAP22. (B) الخريطة الحرارية للجينات ذات التعبير المتباين. (C) تحليل إثراء الوجود الجيني (Gene Ontology). (D) تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG). (E) تحليل إثراء مجموعة الجينات (GSEA) الذي يوضح المسارات المثرية في مجموعة التعبير المرتفع لـ ARHGAP22. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الإثراء الوظيفي للجينات ذات التعبير التفاضلي المرتبطة بـ ARHGAP22
أُجري تحليل الإثراء الوظيفي لتوصيف العمليات البيولوجية المرتبطة بالجينات ذات التعبير التفاضلي. أظهر تحليل الوجود الجيني (Gene Ontology) إثراءً في العمليات البيولوجية المرتبطة بالمناعة، بما في ذلك المناعة بوساطة الكريات البيضاء، والجاذبية الكيميائية، وإنتاج السيتوكينات، وتمايز اللمفاويات وتكاثرها. وعلى مستوى المكونات الخلوية، لوحظ إثراء في المصفوفة خارج الخلوية، والحبيبات الإفرازية، والهياكل المرتبطة بالغشاء البلازمي. أما على مستوى الوظيفة الجزيئية، فقد لوحظ إثراء في نشاط السيتوكينات، وارتباط مستقبلات الكيموكين، والأنشطة المرتبطة بالميتالوببتيداز (الشكل 6C). وأظهر تحليل موسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) إثراءً معنوياً في التفاعل بين السيتوكين ومستقبل السيتوكين، وإشارات الكيموكين، وإشارات الكالسيوم، والمسارات المرتبطة بالعدوى والمناعة (الشكل 6D). كما حدد تحليل إثراء مجموعة الجينات (Gene Set Enrichment Analysis) مسارات متعددة مرتبطة بالمناعة كانت مُثرية في مجموعة التعبير العالي عن ARHGAP22 (الشكل 6E).
بروتين ARHGAP22 والبيئة الدقيقة المناعية في سرطان الخلايا الكلوية الصافي
أظهر التحليل القائم على CIBERSORT لتقدير كسور الخلايا المناعية وجود فروق ذات دلالة إحصائية بين المجموعات ذات التعبير العالي لـ ARHGAP22 والمجموعات ذات التعبير المنخفض لـ ARHGAP22 (الشكل 7A). وبعد تصحيح معدل الاكتشاف الكاذب، أظهرت المجموعة ذات التعبير العالي لـ ARHGAP22 كسوراً تقديرية أعلى من البالعات M2 والخلايا التائية التنظيمية، وكسوراً تقديرية أقل من الخلايا البائية الساذجة، والخلايا الصارية الساكنة، والخلايا التغصنية المنشطة. كما أظهر تحليل الارتباط أن التعبير عن ARHGAP22 ارتبط إيجابياً بالبالعات M2 والخلايا التائية التنظيمية، وارتبط سلبياً بالخلايا البائية الساذجة، والخلايا الصارية الساكنة، والخلايا التغصنية المنشطة (الشكل 7B). أشارت هذه التقديرات المشتقة من CIBERSORT إلى أن ارتفاع التعبير عن ARHGAP22 يرتبط بملف كابت للمناعة في سرطان الخلايا الكلوية الصافي (ccRCC).
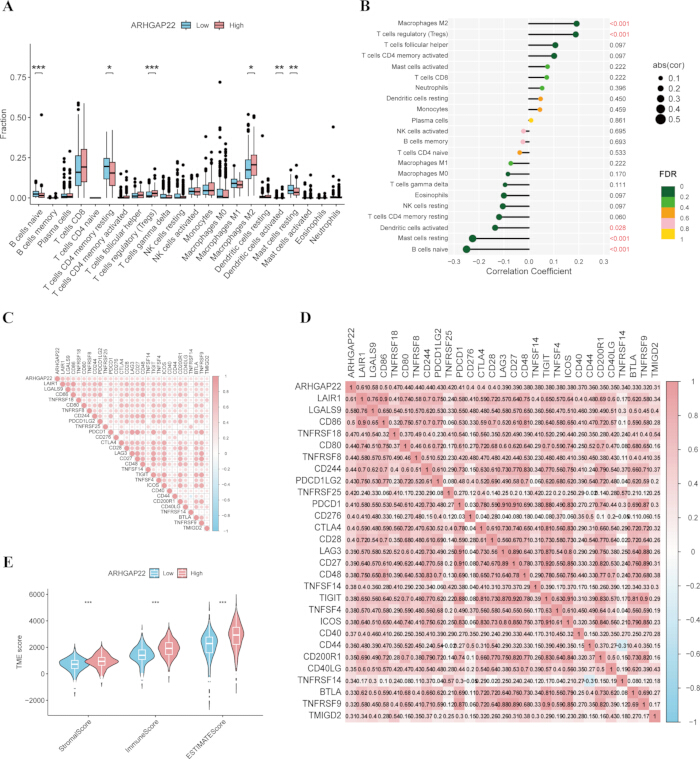
الشكل 7: الارتباط بين تعبير ARHGAP22 وخصائص البيئة الدقيقة المناعية في سرطان الخلايا الكلوية صافية الخلايا. (A) الاختلافات في كسور الخلايا المناعية المقدرة بواسطة CIBERSORT بين مجموعتي التعبير المرتفع لـ ARHGAP22 والتعبير المنخفض لـ ARHGAP22. (B) الارتباطات بين تعبير ARHGAP22 وكسور الخلايا المناعية المقدرة بواسطة CIBERSORT. (C) خريطة حرارية للارتباط توضح الروابط بين تعبير ARHGAP22 وجينات نقاط التفتيش المناعية. (D) مصفوفة ارتباط لـ ARHGAP22 وجزيئات نقاط التفتيش المناعية. (E) الاختلافات في StromalScore وImmuneScore وESTIMATEScore بين مجموعتي التعبير المرتفع لـ ARHGAP22 والتعبير المنخفض لـ ARHGAP22، والتي تم حسابها باستخدام خوارزمية ESTIMATE. *P < 0.05; **P < 0.01; ***P < 0.001. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
بروتين ARHGAP22، ونقاط التفتيش المناعية، ومكونات البيئة المجهرية للورم
ارتبط التعبير المرتفع لبروتين ARHGAP22 ارتباطاً إيجابياً بالعديد من جينات نقاط التفتيش المناعية، بما في ذلك PDCD1LG2 وCTLA4 وLAG3 وTIGIT وICOS (الشكل 7C، D)، مما يشير إلى وجود ارتباط محتمل بالسمات المتعلقة بالهروب المناعي. كما أظهر تحليل ESTIMATE أن قيم StromalScore وImmuneScore وESTIMATEScore كانت أعلى بشكل ملحوظ في المجموعة ذات التعبير المرتفع لـ ARHGAP22 (الشكل 7E)، مما يعكس زيادة في المكونات السدوية والمناعية داخل البيئة المجهرية للورم. وأشارت هذه النتائج إلى أن التعبير عن ARHGAP22 يرتبط بكسور الخلايا المناعية المقدرة بواسطة CIBERSORT، وبتعبير نقاط التفتيش المناعية، وبملف تعريف مثبط للمناعة في البيئة المجهرية للورم في حالات سرطان الخلايا الكلوية الصافية ccRCC.
بروتين ARHGAP22 والحساسية المتوقعة حسابياً للأدوية الموجهة
تم تقييم العلاقة بين تعبير ARHGAP22 والحساسية المتوقعة حسابياً للأدوية الموجهة من خلال مقارنة قيم التركيز المثبط النصفي الأقصى المتوقعة بين مجموعتي التعبير العالي والمنخفض (الشكل 8A–I). أظهرت مجموعة التعبير المنخفض قيم تركيز مثبط نصفي أقصى متوقعة أقل بكثير لكل من axitinib وsorafenib وsavolitinib وforetinib وcediranib وalpelisib وbuparlisib وafuresertib وipatasertib. وتشير قيم التركيز المثبط النصفي الأقصى المتوقعة المنخفضة إلى حساسية أكبر متوقعة حسابياً. واقترحت هذه النتائج وجود ارتباط بين انخفاض تعبير ARHGAP22 وزيادة الحساسية المتوقعة للعوامل الموجهة التي تم تقييمها. وتمثل هذه النتائج تنبؤات حسابية ولا تشكل استجابات دوائية مثبتة تجريبياً أو سريرياً.
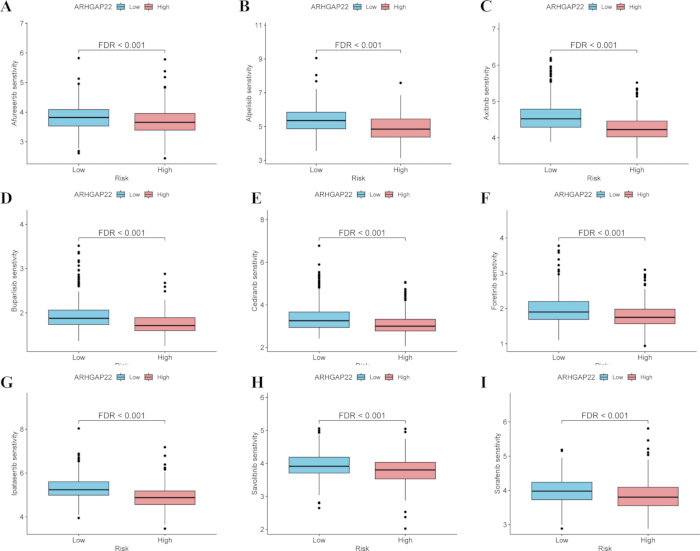
الشكل 8: الارتباط بين تعبير ARHGAP22 والحساسية المتوقعة حاسوبياً للأدوية المستهدفة في سرطان الخلايا الكلوية ذات الخلايا الصافية. (A–I) مقارنة لقيم التركيز المثبط النصفي الأقصى المتوقعة حاسوبياً لكل من axitinib، وsorafenib، وsavolitinib، وforetinib، وcediranib، وalpelisib، وbuparlisib، وafuresertib، وipatasertib، على التوالي، بين مجموعات التعبير العالي والمنخفض لـ ARHGAP22. تشير قيم التركيز المثبط النصفي الأقصى المتوقعة الأقل إلى حساسية أكبر متوقعة للدواء. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
توافر البيانات:
تم الحصول على البيانات الترانسكريبتومية والسريرية التي حُللت في هذه الدراسة من مشروع أطلس جينوم السرطان لسرطان الخلايا الكلوية الصافية (TCGA-KIRC) المتاح للعموم (https://portal.gdc.cancer.gov/). كما تم الحصول على بيانات التحقق الخارجية من التعبير الجيني ومعدلات البقاء من مجموعة بيانات GSE167573 في مستودع Gene Expression Omnibus. واستُرجعت بيانات التعبير البروتيني من أطلس البروتين البشري (https://www.proteinatlas.org/). كما حُللت بيانات التعبير عبر أنواع السرطانات المختلفة باستخدام TIMER2.0، وأُجري التحقق الخارجي من خلال منصة BEST. وتم الحصول على البيانات المرجعية للحساسية الدوائية من مجموعة بيانات Genomics of Drug Sensitivity in Cancer 2، بينما استُمدت مجموعات الجينات المستخدمة في تحليل الإثراء من قاعدة بيانات التواقيع الجزيئية (Molecular Signatures Database). إن مجموعات البيانات الأصلية متاحة للعموم من خلال المستودعات والمنصات المقابلة. وتتوفر نصوص R البرمجية المستخدمة في معالجة البيانات والتحليل الإحصائي والتصور البياني في الملف التكميلي 1. كما تتوفر النتائج المعالجة في الجدول التكميلي 1، الذي يحتوي على النتائج الكاملة لتحليل التعبير التفاضلي؛ والجدول التكميلي 2، الذي يحتوي على نتائج إثراء الوجود الجيني (Gene Ontology)؛ والجدول التكميلي 3، الذي يحتوي على نتائج إثراء مسارات موسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes).
الجدول التكميلي 1: النتائج الكاملة لتحليل التعبير التفاضلي. يحتوي هذا الملف على القائمة الكاملة للجينات ذات التعبير التفاضلي التي تم تحديدها بين مجموعتي التعبير المرتفع والمنخفض لـ ARHGAP22، بما في ذلك معرفات الجينات، وقيم التعبير للمجموعات، وتغيرات الطي اللوغاريتمية (log2 fold changes)، وقيم P، وقيم P المعدلة حسب معدل الاكتشاف الكاذب، واتجاه التنظيم. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 2: نتائج تحليل إثراء الوجود الجيني (Gene Ontology).يحتوي هذا الملف على النتائج الكاملة لإثراء الوجود الجيني للجينات ذات التعبير التفاضلي المرتبطة بـ ARHGAP22، بما في ذلك فئات العمليات البيولوجية، والمكونات الخلوية، والوظائف الجزيئية، إلى جانب إحصائيات الإثراء، وقيم P، وقيم P المعدلة، وأعداد الجينات، ومعرفات الجينات المرتبطة. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 3: نتائج تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG). يحتوي هذا الملف على النتائج الكاملة لإثراء مسارات موسوعة كيوتو للجينات والجينومات للجينات ذات التعبير التفاضلي المرتبطة بـ ARHGAP22، بما في ذلك معرفات وأسماء المسارات، وإحصائيات الإثراء، وقيم P، وقيم P المعدلة، وقيم q، وأعداد الجينات، ومعرفات الجينات المرتبطة بها. يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 1: نصوص R البرمجية لمعالجة البيانات، والتحليل الإحصائي، والتصوير البياني. يحتوي هذا الملف على نصوص R البرمجية المستخدمة في المعالجة المسبقة للبيانات، وتحليل التعبير، وتحليل البقاء، وتحليل الارتباط العيادي المرضي، وتحليل التعبير المشترك، وتحليل التعبير التفاضلي، وتحليل الإثراء الوظيفي، وتحليل الارتشاح المناعي، والتنبؤ بالحساسية الدوائية، وإنشاء الأشكال البيانية. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
يُعد سرطان الخلايا الكلوية (RCC) أحد أكثر الأورام الخبيثة شيوعاً في الجهاز البولي، ويُعتبر سرطان الخلايا الكلوية الصافي (ccRCC) النوع النسيجي السائد والمساهم الرئيسي في الوفيات المرتبطة بسرطان الخلايا الكلوية. وقد ارتفع معدل الإصابة بسرطان الخلايا الكلوية بشكل عام في السنوات الأخيرة، مع وجود تفاوت جغرافي ملحوظ. وتشمل عوامل الخطر المعروفة التدخين، والسمنة، وارتفاع ضغط الدم، وأمراض الكلى المزمنة3˒4. وعلى الرغم من التقدم في التشخيص والعلاج، لا يزال سرطان الخلايا الكلوية الصافي متبايناً من الناحية السريرية؛ حيث يظهر بعض المرضى بإصابة متقدمة أو منتشرة، كما يظل تكرار المرض بعد الجراحة والانتشار البعيد أمراً شائعاً2˒5˒26. لذا، يظل تحديد المؤشرات الحيوية الجزيئية المرتبطة بسلوك الورم والإنذار هدفاً هاماً في أبحاث سرطان الخلايا الكلوية الصافي. وقد أظهر التحليل الحالي أن ARHGAP22 كان مرتفع التعبير في سرطان الخلايا الكلوية الصافي، وارتبط بانخفاض معدل البقاء على قيد الحياة بشكل عام، وسمات إكلينيكية مرضية سلبية، وتغيرات في النسخ الجيني المرتبطة بالمناعة، وملف بيئة دقيقة للورم مثبطة للمناعة، واختلافات في الحساسية المتوقعة حسابياً للعلاجات الموجهة. وتدعم هذه النتائج القيمة المحتملة لـ ARHGAP22 كمؤشر حيوي مرشح للإنذار ومرتبط بالمناعة، على الرغم من أن الفائدة السريرية والعلاقة السببية لم يتم إثباتهما بعد.
يشفر جين ARHGAP22 بروتين تنشيط Rho GTPase المشارك في تنظيم الهيكل الخلوي وحركية الخلايا. يحتوي البروتين على نطاق تماثل بليكسسترين (pleckstrin homology domain)، ونطاق RhoGAP، ومنطقة لولبية ملتفة (coiled-coil) في الطرف الكربوكسيلي، ويمكنه التفاعل مع بروتينات 14-3-3، مما يشير إلى دور له في هجرة الخلايا المنظمة بعوامل النمو22. وباعتباره بروتيناً مرتبطاً بـ FilGAP، يشارك ARHGAP22 في التنظيم التضادي لمحور RhoA–Rac1 وفي التحكم في أنماط هجرة الخلايا21˒27. يتمركز ARHGAP22 بشكل أساسي في الأجسام الداخلية (endosomes) ويمكن نقله إلى الثنيات الغشائية أو الغشاء البلازمي، حيث يثبط تكوين الأقدام الصفائحية (lamellipodia) المعتمدة على Rac وانتشار الخلايا؛ ويرتبط توزيعه داخل الخلية ارتباطاً وثيقاً بنشاط RacGAP20˒23. كما تم الإبلاغ عن ارتباطات متعلقة بالأورام؛ ففي سرطان الخلايا الكلوية الصافي (ccRCC)، تم تحديد ARHGAP22 كجزيء مرشح في التحليلات النسخية المتعلقة بتثبيط البروتين 4 المحتوي على نطاق البرومودومين (bromodomain-containing protein 4)، وارتبط بانخفاض معدل البقاء على قيد الحياة بشكل عام28. كما رُبطت أعضاء عائلة ARHGAP بالتسلل المناعي المعزز للأورام وتطور المرض في سرطان المثانة25، واختلاف التعبير والتنوع في الإكسونات في سرطان الدم النقوي الحاد24، والاستجابة المتباينة لعقار bevacizumab في سرطان القولون والمستقيم النقيلي29.
اتسقت النتائج الحالية مع هذه الملاحظات؛ حيث زاد تعبير ARHGAP22 مع تقدم تصنيفات T وN وM، والدرجة النسيجية، والمرحلة السريرية، وارتبط التعبير المرتفع بقصر مدة البقاء على قيد الحياة بشكل عام. وقد ثبت سابقاً أن تأشير Rac يعزز نمو سرطان الخلايا الكلوية الصافية (ccRCC) والتحول الوعائي16، بينما ارتبط مسار Rho GTPase/Rho-associated coiled-coil-containing protein kinase بالسلوك الخبيث في ccRCC17. لذا، قد يعكس الارتفاع الملحوظ في تنظيم ARHGAP22 التغيرات الجزيئية المرتبطة بالأنماط الظاهرية الورمية العدوانية. وأظهرت تحليلات التعبير المشترك والتعبير التفاضلي أن ARHGAP22 يرتبط بشبكة نسخية واسعة؛ حيث لوحظت ارتباطات إيجابية مع جينات تشمل FMNL1 وCARD9 وTRPM2، بينما لوحظت ارتباطات سلبية مع جينات تشمل BSND وFOXI1. وأظهرت نتائج علم الوجود الجيني (Gene Ontology)، وموسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes)، وتحليل إثراء مجموعة الجينات (Gene Set Enrichment Analysis) إثراءً في المناعة بوساطة الكريات البيضاء، والانجذاب الكيميائي، وإنتاج السيتوكينات، وتمايز اللمفاويات وتكاثرها، والتفاعلات بين السيتوكين ومستقبلاته، وتأشير الكيموكينات. تساهم شبكات الكيموكين في استقطاب الخلايا المناعية، ونمو الورم، والانبثاث في سرطان الخلايا الكلوية (RCC)30، بينما ارتبط إثراء المسارات المتعلقة بالمناعة بسوء الإنذار وتغير البيئة الدقيقة للورم في ccRCC31. كما يُظهر سرطان الخلايا الكلوية الصافية بصمات نسخية مناعية مميزة مرتبطة بالنتيجة السريرية وتعقيد البيئة المناعية الدقيقة32. وقد تم الإبلاغ عن علاقات مماثلة بين التعبير الجيني الشاذ، وإثراء المسارات المناعية، وسوء الإنذار، وأنماط التعبير المشترك المعقدة في أورام خبيثة أخرى33.
ارتبط تعبير ARHGAP22 أيضًا باختلافات في البيئة الدقيقة المناعية للورم. أظهرت مجموعة التعبير العالي نسبًا تقديرية أعلى من الخلايا التائية التنظيمية والخلايا البلعمية M2، ونسبًا تقديرية أقل من الخلايا البائية الساذجة، والخلايا الصارية الساكنة، والخلايا التغصنية النشطة بعد تصحيح معدل الاكتشاف الخاطئ. كما لوحظت ارتباطات إيجابية بين تعبير ARHGAP22 والعديد من جزيئات نقاط التفتيش المناعية، إلى جانب قيم أعلى لكل من ImmuneScore وStromalScore وESTIMATEScore. يتميز سرطان الخلايا الكلوية واضح الخلايا بارتشاح مناعي كبير، ولكن هذه السمة لا تشير بالضرورة إلى استجابة فعالة مضادة للأورام34. قد تحد حالات الخلايا المناعية المختلة والسمات المثبطة للمناعة من فعالية حصار نقاط التفتيش المناعية35. وقد ارتبطت الخلايا التائية التنظيمية والخلايا البلعمية M2 بكبت المناعة، وتطور الورم، وسوء الإنذار في سرطان الخلايا الكلوية (RCC)36˒37، بينما قد يعكس زيادة تعبير نقاط التفتيش المناعية عمليات متعلقة بالتهرب المناعي38. وبناءً على ذلك، تشير النتائج الحالية إلى أن التعبير العالي لـ ARHGAP22 لا يرتبط مجرد بزيادة الارتشاح المناعي، بل بملف مناعي يحتوي على سمات ترتبط عادةً بكبت المناعة. ويظل هذا التفسير استنتاجيًا لأن تقديرات الخلايا المناعية استُمدت من بيانات تسلسل RNA الشامل وطريقة تفكيك حسابية واحدة.
لوحظت أيضاً اختلافات في حساسية الأدوية المتوقعة حاسوبياً بين مجموعات تعبير ARHGAP22. وقد ارتبطت السمات الجزيئية عالية المخاطر سابقاً بتغير في الارتشاح المناعي، وإثراء المسارات المناعية، والاستجابة التفاضلية للأدوية39. كما أُفيد بأن البصمات الجينية المرتبطة بالمناعة في سرطان الخلايا الكلوية الرائق (ccRCC) تعمل على تصنيف البقاء على قيد الحياة والتنبؤ بالاستجابات التفاضلية للعلاج المناعي والعلاج الموجه40˒41. وفي التحليل الحالي، سجلت مجموعة التعبير المنخفض لـ ARHGAP22 قيم تركيز مثبط نصفي أقصى متوقعة أقل لعدة عوامل موجهة. وتشير هذه النتائج إلى وجود ارتباط بين تعبير ARHGAP22 وحساسية الأدوية المتوقعة حاسوبياً، ولكنها لا تثبت الاستجابة الفعلية للعلاج أو الفائدة السريرية. وقد دعمت عدة خيارات منهجية الاتساق التحليلي، بما في ذلك تصفية جودة العينات، واستخدام نقطة قطع تعبير موحدة قائمة على الوسيط، وتصفية الثقة لنتائج CIBERSORT، وتصحيح معدل الاكتشاف الخاطئ للمقارنات المتعددة. ومع ذلك، يجب تفسير حساسية الأدوية المتوقعة على أنها استكشافية، ويتطلب الأمر تحققاً مستقلاً باستخدام بيانات الاستجابة الدوائية المقاسة تجريبياً أو الملحوظة سريرياً.
يجب مراعاة عدة قيود. وعلى الرغم من أن مجموعة البيانات GSE167573 قد وفرت تحققاً خارجياً من تعبير ARHGAP22 وارتباطاته بالبقاء على قيد الحياة، إلا أن التحقق في مجموعات سريرية أكبر ومتعددة المراكز لا يزال ضرورياً. استندت التحليلات بشكل كبير إلى مجموعات بيانات عامة استرجاعية وبيانات تسلسل RNA الشامل (bulk RNA-sequencing)؛ وبناءً على ذلك، تعذر تمييز المصدر الخلوي لتعبير ARHGAP22 بين الخلايا الورمية، والخلايا السدوية، والخلايا المناعية المرتشحة. ومن شأن تسلسل RNA أحادي الخلية، أو التألق المناعي المتعدد، أو النسخيات المكانية (spatial transcriptomics) أن تساعد في معالجة هذا القيد. كما تم استنتاج ارتشاح الخلايا المناعية، وتعبير نقاط التفتيش المناعية، والحساسية الدوائية حسابياً، وقد لا تمثل هذه النتائج الوظيفة البيولوجية أو الاستجابة للعلاج السريري بشكل مباشر. ولم يتم إدراج أي طريقة مستقلة لفك الالتفاف المناعي (immune-deconvolution)، أو مجموعة كيمياء نسيجية مناعية مؤسسية، أو تحليل اضطراب تجريبي. بالإضافة إلى ذلك، فإن الارتباطات الملحوظة لا تثبت علاقات سببية بين تعبير ARHGAP22، والجينات التي يتم التعبير عنها بشكل مشترك، وارتشاح الخلايا المناعية، والاستجابة الدوائية. لذا، ستكون التجارب الميكانيكية، والتحقق السريري الاستشرافي، ومقارنات أداء النماذج مطلوبة قبل التطبيق السريري. وبشكل عام، يوفر سير العمل هذا إطاراً قابلاً للتكرار لتقييم المؤشرات الحيوية المرشحة باستخدام مجموعات البيانات الجزيئية العامة، ولكن الأهمية البيولوجية والسريرية لـ ARHGAP22 تتطلب مزيداً من التأكيد المستقل.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
تم استخدام بيانات متاحة للعموم من أطلس جينوم السرطان (TCGA) في هذه الدراسة. ونعرب عن تقديرنا لشبكة أبحاث TCGA على إنشاء وتوفير هذه الموارد.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| circlize R package | Version 0.4.16 | CRAN | تُستخدم لرسم مخططات circos ومخططات الوتر (chord diagrams). |
| clusterProfiler R package | Version 4.12.0 | Bioconductor | تُستخدم لتحليلات الإثراء من نوع GO وKEGG وGSEA. |
| ComplexHeatmap R package | Version 2.20.0 | Bioconductor | تُستخدم للتصور البياني للخرائط الحرارية المعقدة والخرائط الحرارية للتوصيف السريري. |
| e1071 R package | Version 1.7.16 | CRAN | تُستخدم لانحدار ناقلات الدعم (support vector regression) في التحليلات المتعلقة بـ CIBERSORT. |
| enrichplot R package | Version 1.24.0 | Bioconductor | تُستخدم للتصور البياني لنتائج الإثراء الوظيفي. |
| estimate R package | Version 1.0.13 | R package/source package | تُستخدم لحساب درجات السدى (stromal) والمناعية ودرجات ESTIMATE. |
| ggExtra R package | Version 0.10.1 | CRAN | تُستخدم لمخططات التشتت ذات توزيعات الكثافة الهامشية. |
| ggplot2 R package | Version 3.5.1 | CRAN | تُستخدم للتصور البياني العام للبيانات. |
| ggpubr R package | Version 0.6.0 | CRAN | تُستخدم لمخططات الصندوق (boxplots) ومخططات الكمان (violin plots) والمقارنات الإحصائية. |
| ggrepel R package | Version 0.9.5 | CRAN | تُستخدم لتسميات النصوص غير المتداخلة في مخططات البركان (volcano plots). |
| limma R package | Version 3.60.4 | Bioconductor | تُستخدم للمعالجة المسبقة لبيانات التعبير والتحليلات المتعلقة بالتعبير التفاضلي. |
| oncoPredict R package | Version 1.2 | CRAN | تُستخدم للتنبؤ بالحساسية الدوائية بناءً على البيانات الترانسكريبتومية. |
| org.Hs.eg.db R package | Version 3.19.1 | Bioconductor | تُستخدم للتوصيف الجيني والتحويل بين رموز الجينات ومعرفات Entrez IDs. |
| pheatmap R package | Version 1.0.12 | CRAN | تُستخدم للتصور البياني للخرائط الحرارية. |
| preprocessCore R package | Version 1.68.0 | Bioconductor | تُستخدم للتطبيع المئيني (quantile normalization) في التحليلات المتعلقة بـ CIBERSORT. |
| R software | Version 4.4.0 | R Foundation for Statistical Computing | يُستخدم للتحليل الإحصائي والتصور البياني. |
| RColorBrewer R package | Version 1.1.3 | CRAN | تُستخدم لتوليد لوحات الألوان في التصور البياني. |
| regplot R package | Version 1.1 | CRAN | تُستخدم للتصور البياني للمخططات النوجرامية (nomogram). |
| reshape2 R package | Version 1.4.4 | CRAN | تُستخدم لإعادة تشكيل البيانات قبل التصور البياني. |
| rms R package | Version 6.8.1 | CRAN | تُستخدم لبناء النماذج الإنذارية وتحليل المعايرة والتحليلات المتعلقة بالمخططات النوجرامية. |
| scales R package | Version 1.4.0 | CRAN | تُستخدم لضبط المقاييس وإعدادات شفافية الألوان. |
| survival R package | Version 3.5.8 | CRAN | تُستخدم لانحدار Cox وتحليل البقاء على قيد الحياة بطريقة Kaplan-Meier. |
| survminer R package | Version 0.4.9 | CRAN | تُستخدم للتصور البياني لمنحنيات البقاء على قيد الحياة لـ Kaplan-Meier. |
| timeROC R package | Version 0.4 | CRAN | تُستخدم لتحليل منحنى ROC المعتمد على الوقت. |
المراجع
- Winter TD et al. Using Mendelian randomization to investigate etiologic heterogeneity across renal cell carcinoma subtypes. Int J Epidemiol. 2025;54(6):dyaf177. https://doi.org/10.1093/ije/dyaf177
- Hsieh JJ et al. Renal cell carcinoma. Nat Rev Dis Primers. 2017;3:17009. https://doi.org/10.1038/nrdp.2017.9
- Capitanio U et al. Epidemiology of renal cell carcinoma. Eur Urol. 2019;75(1):74-84.
- Siegel RL, Miller KD, Fuchs HE, Jemal A. Cancer statistics, 2022. CA Cancer J Clin. 2022;72(1):7-33.
- Wiechno P et al. Contemporary treatment of metastatic renal cell carcinoma. Med Oncol. 2018;35(12):156. https://doi.org/10.1007/s12032-018-1217-1
- Chen W et al. Targeting renal cell carcinoma with a HIF-2 antagonist. Nature. 2016;539(7627):112-117.
- Rydzanicz M, Wrzesiński T, Bluyssen HA, Wesoły J. Genomics and epigenomics of clear cell renal cell carcinoma: recent developments and potential applications. Cancer Lett. 2013;341(2):111-126.
- Barata PC, Rini BI. Treatment of renal cell carcinoma: current status and future directions. CA Cancer J Clin. 2017;67(6):507-524.
- Chowdhury N, Drake CG. Kidney cancer: an overview of current therapeutic approaches. Urol Clin North Am. 2020;47(4):419-431.
- Gulati S, Vaishampayan U. Current state of systemic therapies for advanced renal cell carcinoma. Curr Oncol Rep. 2020;22(3):26. https://doi.org/10.1007/s11912-020-0892-1
- Haga RB, Ridley AJ. Rho GTPases: regulation and roles in cancer cell biology. Small GTPases. 2016;7(4):207-221.
- Sahai E, Marshall CJ. RHO-GTPases and cancer. Nat Rev Cancer. 2002;2(2):133-142.
- Bustelo XR. RHO GTPases in cancer: known facts, open questions, and therapeutic challenges. Biochem Soc Trans. 2018;46(3):741-760.
- Crosas-Molist E et al. Rho GTPase signaling in cancer progression and dissemination. Physiol Rev. 2022;102(1):455-510.
- Li H, Peyrollier K, Kilic G, Brakebusch C. Rho GTPases and cancer. BioFactors. 2014;40(2):226-235.
- Goka ET, Chaturvedi P, Lopez DTM, Lippman ME. Rac signaling drives clear cell renal carcinoma tumor growth by priming the tumor microenvironment for an angiogenic switch. Mol Cancer Ther. 2020;19(7):1462-1473.
- Thompson JM, Landman J, Razorenova OV. Targeting the RhoGTPase/ROCK pathway for the treatment of VHL/HIF pathway-driven cancers. Small GTPases. 2020;11(1):32-38.
- Feng J et al. RhoJ promotes the progression of clear cell renal cell carcinoma via .the TNF-α/NF-κB axis. Transl Androl Urol. 2025;14(7):1849-1864.
- Guo K et al. Activation of RHO-GTPase gene pattern correlates with adverse clinical outcome and immune microenvironment in clear cell renal cell carcinoma. Clin Exp Med. 2025;25(1):67. https://doi.org/10.1007/s10238-025-01593-3
- Mori M, Saito K, Ohta Y. ARHGAP22 localizes at endosomes and regulates actin cytoskeleton. PLoS One. 2014;9(6):e100271. https://doi.org/10.1371/journal.pone.0100271
- Nakamura F. FilGAP and its close relatives: a mediator of Rho-Rac antagonism that regulates cell morphology and migration. Biochem J. 2013;453(1):17-25.
- Hu SH et al. The weak complex between RhoGAP protein ARHGAP22 and signal regulatory protein 14-3-3 has 1:2 stoichiometry and a single peptide binding mode. PLoS One. 2012;7(8):e41731. https://doi.org/10.1371/journal.pone.0041731
- Mori M et al. Endosomal localization of RacGAP protein ARHGAP22 regulates its GAP activity in human melanoma cells. Anticancer Res. 2022;42(12):5763-5771.
- El-Masry OS, Alamri AM, Alzahrani F, Alsamman K. ADAMTS14, ARHGAP22, and EPDR1 as potential novel targets in acute myeloid leukaemia. Heliyon. 2022;8(3):e09065. https://doi.org/10.1016/j.heliyon.2022.e09065
- Yang C et al. Transcriptomic analysis identified ARHGAP family as a novel biomarker associated with tumor-promoting immune infiltration and nanomechanical characteristics in bladder cancer. Front Cell Dev Biol. 2021;9:657219. https://doi.org/10.3389/fcell.2021.657219
- Schiavoni V et al. Recent advances in the management of clear cell renal cell carcinoma: novel biomarkers and targeted therapies. Cancers (Basel). 2023;15(12):3207. https://doi.org/10.3390/cancers15123207
- Sanz-Moreno V et al. Rac activation and inactivation control plasticity of tumor cell movement. Cell. 2008;135(3):510-523.
- Sakaguchi T et al. Bromodomain protein BRD4 inhibitor JQ1 regulates potential prognostic molecules in advanced renal cell carcinoma. Oncotarget. 2018;9(33):23003-23017.
- Stránská J et al. Copy number variation and clinical response to chemotherapy and bevacizumab in Czech patients with metastatic colorectal cancer. Klin Onkol. 2024;37(4):277-285.
- Parihar JS, Tunuguntla HS. Role of chemokines in renal cell carcinoma. Rev Urol. 2014;16(3):118-121.
- Chen Z, Wu R, Ma J, Zheng J. C chemokines are prognostic biomarkers correlated with diverse immune cell infiltrations in clear cell renal cell carcinoma. Transl Cancer Res. 2022;11(8):2501-2522.
- Şenbabaoğlu Y et al. Tumor immune microenvironment characterization in clear cell renal cell carcinoma identifies prognostic and immunotherapeutically relevant messenger RNA signatures. Genome Biol. 2016;17(1):231. https://doi.org/10.1186/s13059-016-1092-z
- Song DM et al. LIG1 is a novel marker for bladder cancer prognosis: evidence based on experimental studies, machine learning, and single-cell sequencing. Front Immunol. 2024;15:1419126. https://doi.org/10.3389/fimmu.2024.1419126
- Vuong L, Kotecha RR, Voss MH, Hakimi AA. Tumor microenvironment dynamics in clear-cell renal cell carcinoma. Cancer Discov. 2019;9(10):1349-1357.
- Burgers FH et al. Immunological features of clear-cell renal-cell carcinoma and resistance to immune checkpoint inhibitors. Nat Rev Nephrol. 2025;21(10):687-701.
- Davidsson S et al. Infiltration of M2 macrophages and regulatory T cells plays a role in recurrence of renal cell carcinoma. Eur Urol Open Sci. 2020;20:62-71.
- Zhang X et al. Tumor-associated M2 macrophages in the immune microenvironment influence the progression of renal clear cell carcinoma by regulating M2 macrophage-associated genes. Front Oncol. 2023;13:1157861. https://doi.org/10.3389/fonc.2023.1157861
- Tronik-Le Roux D et al. Comprehensive landscape of immune checkpoints uncovered in clear cell renal cell carcinoma reveals new and emerging therapeutic targets. Cancer Immunol Immunother. 2020;69(7):1237-1252.
- Hong J et al. A zinc metabolism-related gene signature for predicting prognosis and characteristics of breast cancer. Front Immunol. 2023;14:1276280. https://doi.org/10.3389/fimmu.2023.1276280
- Xu W et al. Prognostic immunophenotyping clusters of clear cell renal cell carcinoma defined by the unique tumor immune microenvironment. Front Cell Dev Biol. 2021;9:785410. https://doi.org/10.3389/fcell.2021.785410
- Gu J et al. A novel immune-related gene signature for predicting immunotherapy outcomes and survival in clear cell renal cell carcinoma. Sci Rep. 2023;13(1):18922. https://doi.org/10.1038/s41598-023-45966-8